Cette étude combine des tissus humains appariés, deux lignées cellulaires de carcinome pulmonaire à petites cellules, des tests d'instabilité de l'ARN et des protéines, des expériences de sauvetage génétique et un modèle de xénogreffe avec inhibition de FOXD1 afin d'analyser la régulation de FOXD1 associée à METTL3 et de fournir un cadre reproductible pour l'étude des mécanismes oncogéniques post-transcriptionnels.
Article de recherche
La régulation de FOXD1 associée à METTL3 favorise la progression du carcinome squameux du poumon : une approche expérimentale multimodèle
* These authors contributed equally
Dans cet article
Résumé
Résumé
Le carcinome pulmonaire à cellules squameuses (LUSC) offre des options de traitement limitées, ce qui motive l'étude des voies moléculaires qui favorisent la croissance des cellules tumorales. L'expression de la boîte à fourchette D1 (FOXD1) a été évaluée à l'aide de l'analyse interactive de profilage d'expression génique (GEPIA), de la réaction de transcription inverse quantitative en chaîne par polymérase (qRT-PCR), du western blot et de l'immunohistochimie sur des tissus appariés et des lignées cellulaires. FOXD1 ou la méthyltransférase-like 3 (METTL3) ont été épuisés dans des cellules LUSC, et la viabilité cellulaire, l'apoptose, la migration, le niveau global de N6-méthyladénosine (m6A), la stabilité des transcrits et la stabilité protéique ont été évalués. Un modèle de xénogreffe avec inhibition de FOXD1 a permis de tester le rôle de FOXD1 in vivo ; METTL3 n'a pas été manipulé chez les animaux.
L'expression de FOXD1 était plus élevée dans les tissus et cellules de LUSC que dans les témoins correspondants. L'extinction de FOXD1 a réduit la viabilité et la migration, augmenté l'apoptose et supprimé la croissance des xénogreffes. L'expression de METTL3 était corrélée à celle de FOXD1 dans les tissus appariés de LUSC. Dans les cellules en culture, l'extinction de METTL3 a diminué l'abondance globale de m6A et celle de FOXD1, tandis que la réexpression de FOXD1 a partiellement restauré les phénotypes associés. Les essais à l'actinomycine D, à la cycloheximide et au MG132 étaient compatibles avec des modifications liées à METTL3 de la stabilité de l'ARN et de la protéine FOXD1.
Ces données soutiennent une association fonctionnelle entre METTL3 et FOXD1 dans les cellules de CUP. In vivo, l'extinction de FOXD1 a supprimé la croissance du xénogreffe et réduit la coloration Ki-67, établissant ainsi FOXD1 comme un promoteur de la croissance du xénogreffe. La liaison directe entre METTL3 et FOXD1, la modification m6A spécifique du site, la dépendance aux lecteurs et la validation in vivo de la voie complète METTL3–FOXD1 restent à établir.
Introduction
Le cancer du poumon demeure l'une des principales causes de mortalité par cancer dans le monde entier1,2. Le carcinome épidermoïde du poumon (LUSC), un sous-type histologique majeur du cancer du poumon non à petites cellules (NSCLC), se manifeste souvent à un stade où un traitement local curatif n'est plus réalisable3,4. Le traitement systémique s'est amélioré, mais de nombreux patients connaissent encore de mauvais résultats5. La caractérisation de programmes moléculaires soutenant la croissance du LUSC pourrait donc permettre d'identifier des biomarqueurs testables et des hypothèses thérapeutiques.
La boîte forkhead D1 (FOXD1) est un facteur de transcription impliqué dans les cancers colorectaux, de la tête et du cou, gastriques, des cellules squameuses buccales et du sein6,7,8,9,10. Dans le CBNPC, l'expression de FOXD1 a été associée à un pronostic défavorable ainsi qu'à la croissance et à la métastase expérimentales des cellules11,12. Le microARN-30a-5p supprime également la prolifération et la migration des cellules de CUSP en ciblant FOXD113. Ces observations désignent FOXD1 comme un régulateur plausible du CUSP, mais elles n'établissent pas comment son expression est maintenue dans cette maladie.
La N6-méthyladénosine (m6A) est une modification réversible de l'ARN, installée, éliminée et interprétée par des protéines appelées écrivains, effaceurs et lecteurs. Ce système régulateur peut influencer le traitement de l'ARN, la traduction et la dégradation, et sa perturbation a été associée à des phénotypes malins et à la réponse au traitement14,15,16,17. La méthyltransférase-like 3 (METTL3) est une composante catalytique du complexe écrivain m6A ; toutefois, une simple corrélation entre METTL3 et FOXD1 ne permet pas de démontrer une méthylation directe ou une régulation médiée par des lecteurs.
Nous avons émis l'hypothèse que METTL3 favorise la progression du carcinome pulmonaire à petites cellules (LUSC) en maintenant l'expression de FOXD1 par une régulation post-transcriptionnelle associée à la méthylation m6A. En combinant des échantillons cliniques appariés, deux lignées cellulaires tumorales, des tests de perte de fonction et de complémentation, des analyses de stabilité des ARN messagers et des protéines, ainsi qu'un modèle xénogreffe avec inhibition de FOXD1, cette étude établit un cadre fonctionnel permettant d'explorer la relation entre METTL3 et FOXD1, tout en distinguant une simple association de la méthylation directe et spécifique à un site donné.
Protocole
Le prélèvement de tissus humains a été réalisé conformément à la Déclaration d'Helsinki et a été approuvé par le comité d'évaluation institutionnel du Premier hôpital de l'Université Jilin (numéro d'approbation 2022-339 ; 22 juillet 2022), et un consentement éclairé écrit a été obtenu de la part de tous les participants. Le protocole animal a été approuvé par le comité de gestion des animaux du Premier hôpital de l'Université Jilin (numéro d'approbation 2022-0015 ; 25 janvier 2022) et a été mené conformément aux lignes directrices institutionnelles relatives aux soins et à l'utilisation des animaux.
Sujets de l'étude
Les échantillons archivés comprenaient 12 paires de tissus primaires de carcinome pulmonaire non à petites cellules (LUSC) et de tissus adjacents non tumoraux prélevés chez des patients ayant subi une chirurgie entre janvier 2019 et décembre 2020. Les patients éligibles présentaient un carcinome pulmonaire non à petites cellules (LUSC) primitif confirmé histologiquement, aucune métastase documentée et aucun traitement dirigé contre le LUSC au cours des 6 mois précédents. Les cas ont été sélectionnés à l’aide d’une table de nombres aléatoires et comprenaient sept hommes et cinq femmes âgés de 30 à 65 ans. Un consentement éclairé écrit a été obtenu de la part de tous les participants.
Lignées cellulaires
Les cellules épithéliales bronchiques humaines BEAS-2B (RRID : CVCL_0168), les cellules LUSC SK-MES-1 (RRID : CVCL_0630) et les cellules NCI-H226 (RRID : CVCL_1544) ont été obtenues auprès de la banque de cellules de l'Académie chinoise des sciences. Les cellules ont été cultivées dans un milieu de Dulbecco modifié (DMEM) contenant 10 % de sérum de veau fœtal et 1 % de pénicilline-streptomycine à 37 °C dans une atmosphère à 5 % de CO2. Les identifiants commerciaux sont regroupés dans le Tableau des matériaux accompagnant.
Écranage par ARN interférents courts et complémentation
Trois petits ARN interférents ciblant individuellement FOXD1 ou METTL3 ont été testés dans les cellules SK-MES-1 et NCI-H226. L'efficacité de l'extinction génique a été évaluée 48 h après la transfection par PCR quantitative en temps réel après transcription inverse (qRT-PCR) et immunoblotting. L'ARNi FOXD1-1 a été utilisé pour les tests fonctionnels ultérieurs de FOXD1 car il a induit la réduction la plus importante dans les deux lignées cellulaires. Les expériences ultérieures sur METTL3 ont utilisé le réactif si-METTL3 sélectionné à partir du criblage. L'enregistrement archivé ne permet pas d'identifier un SmartPool ni de conserver une séquence ou un identifiant de fournisseur pouvant être attribué avec certitude. Pour les expériences de complémentation, les cellules ont reçu le réactif si-METTL3 sélectionné, le vecteur d'overexpression de FOXD1, ou les deux ; l'expression et les phénotypes cellulaires ont été évalués 48 h après la transfection.
Isolation de l'ARN et PCR-qRT
L'ARN total a été isolé à partir de tissus ou de cellules à l'aide d'un réactif à base de phénol–guanidinium, puis rétrotranscrit à l'aide d'un kit de rétrotranscription commercial. La qRT-PCR a été réalisée avec un mélange maître TB Green sur un système de PCR en temps réel (RRID : SCR_018051). Les séquences des amorces sont indiquées dans le Tableau 1. L'expression relative a été normalisée par rapport à la déshydrogénase du glycérinaldéhyde 3-phosphate (GAPDH). La préparation des réactions et le cyclage thermique ont été effectués conformément au protocole du fabricant pour le mélange maître indiqué.
Immunotransfert
Les tissus ou cellules ont été lysés dans un tampon d'immunoprécipitation radio (RIPA) contenant des inhibiteurs de protéases. Des quantités équivalentes de protéines ont été séparées par électrophorèse sur gel de polyacrylamide en présence de dodécylsulfate de sodium (SDS-PAGE) et transférées sur des membranes de fluorure de polyvinylidène (PVDF). Les membranes ont été incubées toute la nuit à 4 °C avec des anticorps dirigés contre FOXD1 (1:1 000), METTL3 (1:1 000 ; RRID : AB_2142033) ou GAPDH (1:2 000 ; RRID : AB_10622025), puis avec une immunoglobuline G anti-lapin conjuguée à la peroxydase de raifort pendant 1 h à température ambiante. Les signaux ont été révélés par chimiluminescence améliorée, en utilisant GAPDH comme témoin de chargement. Le Tableau des matériaux identifie les anticorps primaires commerciaux et indique le réactif secondaire comme anticorps de détection immunoglobuline G anti-lapin.
Viabilité cellulaire et apoptose
Pour les mesures de viabilité, les cellules LUSC témoins et transfectées ont été ensemencées dans des plaques de 96 puits à raison de 2 000 cellules par puits. Toutes les 12 heures, 10 µL du réactif du kit de comptage cellulaire-8 ont été ajoutés par puits, les plaques ont été incubées pendant 1 heure à 37 °C, puis l'absorbance a été mesurée à 450 nm. Pour l'analyse de l'apoptose, 1 × 10⁵ cellules par puits ont été ensemencées dans des plaques de 6 puits et analysées 48 heures après la transfection. Les cellules récoltées ont été traitées selon les instructions du kit Annexine V–fluorescéine isothiocyanate (FITC)/iodure de propidium (PI), resuspendues dans 100 µL de tampon de liaison, colorées avec 5 µL de chaque réactif pendant 30 minutes à température ambiante à l'abri de la lumière, puis analysées par cytométrie en flux dans les 4 heures suivant le marquage.
Migration en Transwell
Les cellules LUSC transfectées ont été placées dans un milieu sans sérum dans la chambre supérieure de la transwell ; la chambre inférieure contenait 500 µL de milieu supplémenté avec 10 % de sérum de veau fœtal. Après 24 h, les cellules migrées ont été fixées avec du paraformaldéhyde à 4 % et colorées au violet de crésyl pendant 10 min. Les cellules non migrées situées sur la surface supérieure de la membrane ont été éliminées à l’aide d’un coton-tige. Les cellules migrées ont été observées au microscope avec des paramètres d’acquisition identiques et quantifiées à l’aide d’ImageJ (RRID : SCR_003070).
Modification par méthylation m6A
L'abondance globale de m6A a été mesurée à l'aide d'un dosage colorimétrique de la méthylation de l'ARN. Après l'extraction de l'ARN et l'évaluation de sa qualité, 200 ng d'ARN ont été appliqués dans chaque puits du dosage. Un anticorps de capture (50 µL) a été ajouté pendant 60 min à température ambiante. Les puits ont été lavés trois fois, puis incubés avec 50 µL d'anticorps de détection pendant 30 min, lavés quatre fois, puis incubés avec une solution d'amplification du signal pendant 30 min. L'absorbance a été mesurée à 450 nm. Toutes les étapes ont suivi les instructions du kit indiquées.
Détection de la stabilité de l'ARNm
Des cellules LUSC ont été mises en culture dans des plaques de 6 puits et transfectées avec un ARN interférent contrôle négatif (si-NC) ou un ARN interférent ciblant METTL3 (si-METTL3). Après 48 h, de l'actinomycine D a été ajoutée à une concentration de 5 µg/mL afin d'arrêter la transcription. Les cellules ont été récoltées à 0 h, 2 h, 4 h et 6 h, l'ARN total a été extrait, et l'abondance des transcrits de FOXD1 a été mesurée par qRT-PCR.
Cycloheximide (CHX) et dosages MG132
Pour chaque test de point final avec inhibiteur, des cellules contrôles sans traitement, des cellules contrôles traitées à l'inhibiteur et des cellules surexprimant METTL3 traitées à l'inhibiteur ont été comparées. Le MG132 a été utilisé à 10 µM et le CHX à 20 µM ; les lysats ont été recueillis après 12 h pour une immunotransfert. Pour le cours temporel au CHX, des cellules transfectées avec si-NC ou si-METTL3 ont été traitées avec 20 µM de CHX et récoltées à 0 h, 3 h, 6 h et 9 h. L'abondance protéique de FOXD1 a été mesurée par immunotransfert.
In vivo expériences
Des souris BALB/c nues athymiques âgées de cinq semaines ont été réparties en groupes contrôle négatif et groupe avec inhibition de FOXD1 dans les cellules SK-MES-1 (n = 8 souris par groupe). Chaque souris a reçu une injection sous-cutanée d’environ 8 × 10⁶ cellules. Le suivi des tumeurs a commencé une semaine après l’implantation ; la taille des tumeurs a été enregistrée tous les 4 jours pendant 20 jours consécutifs. Les souris ont été euthanasiées selon les protocoles institutionnels approuvés le jour 27 après l’inoculation, immédiatement après la dernière mesure, puis les tumeurs ont été excisées, pesées et photographiées. Des populations cellulaires stables avec inhibition de FOXD1 et des populations cellulaires contrôle négatif appariées de cellules SK-MES-1 ont été utilisées pour l’implantation.
Immunochimie
Les tumeurs excisées ont été incluses dans la paraffine et coupées en sections de 4 à 5 µm. Les sections ont été déparaffinisées, réhydratées, puis incubées toute la nuit à 4 °C avec l'anticorps primaire, suivies d'une incubation avec l'anticorps secondaire approprié pendant 30 min. Les cellules positives pour l'antigène ont été visualisées à l'aide d'un substrat de diaminobenzidine. FOXD1 et Ki-67 ont été évalués dans les xénogreffes, les sections appariées étant traitées dans le même lot de coloration et imagées avec des paramètres d'acquisition identiques.
Analyse statistique
Les analyses ont été réalisées à l'aide de GraphPad Prism version 8 (RRID : SCR_002798) et de R (RRID : SCR_001905). Les comparaisons entre deux groupes ont utilisé le test t de Student, tandis que les comparaisons impliquant plus de deux groupes ont utilisé une analyse de variance. Les analyses appariées de tissus humains ont inclus 12 paires de patients ; les résumés in vitro représentent trois expériences biologiques indépendantes ; les analyses de xénogreffes ont utilisé huit souris par groupe. Les réplicats techniques n'ont pas été considérés comme des observations indépendantes. Les données sont présentées sous la forme moyenne ± écart-type. Une valeur de P bilatérale < 0,05 a été considérée comme statistiquement significative.
Résultats
L'expression de FOXD1 est augmentée dans les tissus humains de CUNP
Une requête d'analyse interactive de profilage de l'expression génique (GEPIA) a révélé une abondance plus élevée du transcrit FOXD1 dans les échantillons de CUP par rapport aux échantillons pulmonaires normaux, tandis que la comparaison avec l'adénocarcinome pulmonaire n'a pas atteint la significativité (Figure 1A). L'analyse de 12 échantillons appariés de CUP et de tissus non tumoraux adjacents a donné la même tendance d'évolution par qRT-PCR et immunoblotting (Figure 1B,C). La coloration immunohistochimique a également montré un signal FOXD1 plus intense dans les sections tumorales que dans les tissus adjacents appariés (Figure 1D).
L'extinction de FOXD1 réduit la viabilité et la migration, et augmente l'apoptose dans les cellules de CUP
L'abondance du transcrit FOXD1 était plus élevée dans les cellules SK-MES-1 et NCI-H226 que dans les cellules BEAS-2B (Figure 2A). Trois ARN interférents ciblant FOXD1 ont été testés ; le siARN-1 a induit la plus forte réduction détectée par qRT-PCR et immunoblot et a été sélectionné pour les essais ultérieurs (Figure 2B,C). Par rapport au témoin négatif, l'extinction de FOXD1 a réduit le signal du kit de comptage cellulaire Cell Counting Kit-8 (Figure 2D), augmenté le nombre de cellules positives pour l'annexine V (Figure 2E) et diminué la migration en Transwell (Figure 2F) dans les deux lignées cellulaires de CUP. Un seul réactif sélectionné a été utilisé par la suite, de sorte que les résultats fonctionnels ne constituent pas une exclusion indépendante de la séquence des effets hors cible.
L'expression de METTL3 est corrélée à celle de FOXD1 dans les échantillons de CUP
La méthylation m6A est une modification chimique dynamique et réversible largement présente chez les eucaryotes, régulée par des méthyltransférases et des déméthylases, et reconnue ainsi que traitée par des protéines liant le m6A18. Le signal global de m6A était plus élevé dans les 12 tissus de CUPA que dans les tissus adjacents appariés, et également plus élevé dans les deux lignées cellulaires de CUPA que dans les cellules BEAS-2B (Figure 3A). Les transcrits codant pour METTL3, METTL14, WTAP et RBM15 étaient augmentés dans les échantillons tumoraux appariés (Figure 3B). Dans les données GEPIA et le jeu de 12 tumeurs, FOXD1 présentait la plus forte association positive avec METTL3 ; l'association avec RBM15 était plus faible (Figure 3C,D). Le immunoblotting a par ailleurs révélé une abondance plus élevée de METTL3 dans les tissus tumoraux (Figure 3E). Ces analyses établissent une variation concomitante, et non une régulation directe.
L'extinction de METTL3 modifie l'abondance de FOXD1 et les phénotypes des cellules de CUP
Trois ARN interférents ciblant METTL3 ont été testés dans des cellules SK-MES-1 et NCI-H226 par qRT-PCR et immunoblotting (Figure 4A,B). L'extinction de METTL3 a réduit le signal global de m6A (Figure 4C). La surexpression de FOXD1 a augmenté les niveaux de FOXD1 sans augmenter ceux de METTL3 (Figure 4D), et l'expérience de complémentation en quatre groupes a confirmé une diminution de l'abondance de FOXD1 après l'extinction de METTL3, ainsi que sa restauration par le vecteur d'expression de FOXD1 (Figure 4E,F). L'extinction de METTL3 a réduit la viabilité et la migration cellulaire, et augmenté l'apoptose ; la réexpression de FOXD1 a partiellement contrarié ces effets (Figure 4G–I). Ainsi, les données de complémentation sont compatibles avec un rôle de FOXD1 agissant en aval de METTL3 dans les cellules en culture.
La perturbation de METTL3 est associée à la stabilité de l'ARN et de la protéine FOXD1
Des preuves croissantes indiquent que la modification des ARNm par m6A module divers aspects du cycle de l'ARNm, notamment l'épissage des pré-ARNm, la traduction, l'exportation nucléocytoplasmique, la dégradation et l'épissage19,20. SRAMP a identifié des motifs candidats de m6A dans l'ARN de FOXD1, et m6A2Target a répertorié METTL3 comme un écrivain prédit associé à FOXD1 dans les cellules H1299 (Figure 5A,B). Ces sorties de bases de données ont un caractère générateur d'hypothèses et ne démontrent ni la liaison ni la méthylation site-spécifique dans les cellules de CUSP. Après blocage transcriptionnel par l'actinomycine D, l'ARN de FOXD1 a diminué plus rapidement après l'extinction de METTL3 que dans les cellules témoins (Figure 5C). L'abondance de FOXD1 était plus élevée dans les cellules surexprimant METTL3 traitées par MG132 que dans les contrôles vecteurs traités par MG132, alors que ce profil n'était pas observé après traitement par CHX (Figure 5D,E). Le cours temporel avec CHX a montré une perte plus rapide de la protéine FOXD1 après l'extinction de METTL3 (Figure 5F). Dans leur ensemble, ces tests sont compatibles avec des modifications associées à METTL3 de la stabilité de l'ARN et de la protéine FOXD1, mais ils n'identifient pas l'adénosine modifiée, ne démontrent pas de liaison directe et ne définissent pas de lecteur de m6A.
L'extinction de FOXD1 supprime la croissance du xénogreffe de CSCp
Afin de tester la fonction de FOXD1 in vivo, des cellules SK-MES-1 témoins et avec inhibition de FOXD1 ont été implantées par voie sous-cutanée chez des souris nues (n = 8 par groupe). À partir de la première semaine suivant l'implantation, les tumeurs ont été mesurées tous les 4 jours pendant 20 jours, puis prélevées au jour 27 après l'inoculation. Les tumeurs excisées étaient plus petites dans le groupe avec inhibition de FOXD1 (Figure 6A), leurs courbes de croissance augmentaient plus lentement (Figure 6B) et leurs poids finaux étaient inférieurs (Figure 6C). La coloration pour FOXD1 et Ki-67 était également réduite dans les tumeurs avec inhibition (Figure 6D). Ces expériences évaluent uniquement l'inhibition de FOXD1 ; elles ne testent pas l'inhibition de METTL3 in vivo.
Pris ensemble, FOXD1 était surexprimé dans les tissus et cellules de carcinome pulmonaire épidermoïde et favorisait la prolifération, la migration et la croissance de xénogreffes. L’extinction de METTL3 a réduit les niveaux globaux de m6A, diminué l’expression de FOXD1 et altéré les phénotypes cellulaires malins, tandis que la réexpression de FOXD1 a partiellement inversé ces effets. Les essais d’instabilité soutiennent une régulation post-transcriptionnelle de FOXD1 associée à METTL3, mais n’établissent pas une méthylation directe site-spécifique ni une récupération in vivo de l’ensemble du chemin de signalisation. Le schéma de l’étude est résumé dans la Figure 7.
DISPONIBILITÉ DES DONNÉES :
Toutes les données analysées dans cette étude sont incluses dans l'article et ses figures. Les données numériques dépersonnalisées à la base des résumés rapportés sont disponibles auprès de l'auteur correspondant sur demande raisonnable, sous réserve des exigences institutionnelles en matière de gouvernance et de protection des participants. Aucun fichier de simulation ni code d'analyse personnalisé n'a été utilisé.
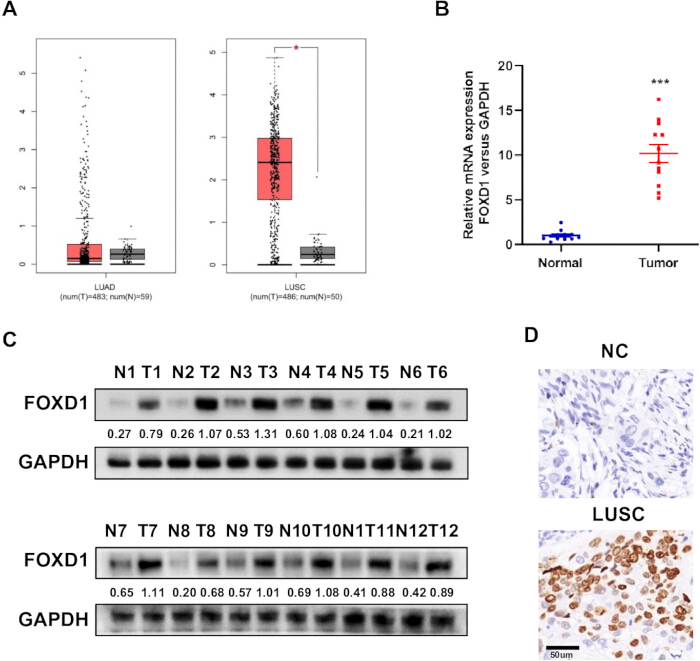
Figure 1 : Expression de FOXD1 dans des échantillons de cancer du poumon humain. (A) Comparaison GEPIA de l'abondance des transcrits de FOXD1 dans l'adénocarcinome du poumon (LUAD) et le carcinome épidermoïde du poumon (LUSC) par rapport aux échantillons pulmonaires normaux. (B) Abondance des transcrits de FOXD1 dans 12 paires de tissus LUSC et tissus adjacents non tumoraux. (C) Abondance de la protéine FOXD1 dans les mêmes tissus appariés. (D) Immunohistochimie représentative de FOXD1. Nombre d'échantillons humains = 12 paires ; les répétitions techniques de type in vitro ne modifient pas le nombre au niveau du patient. Échelle dans le panneau D = 50 µm. ***P < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
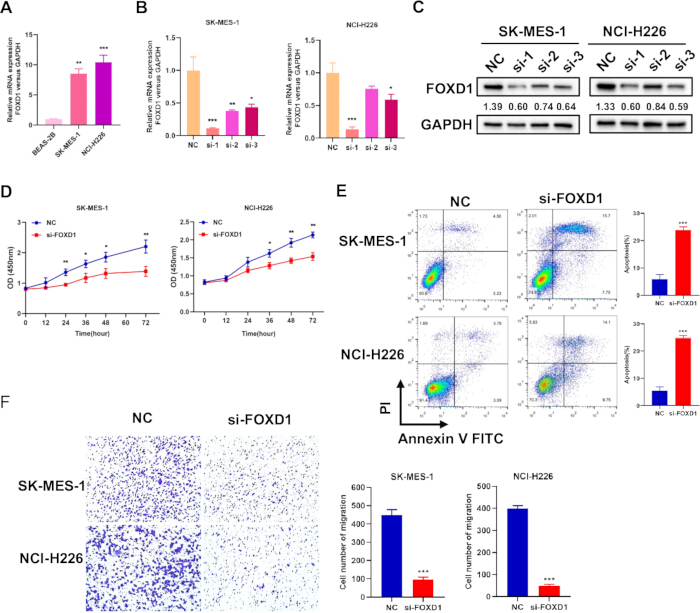
Figure 2 : Effets de l'extinction de FOXD1 dans les cellules SK-MES-1 et NCI-H226. (A) Abondance des transcrits de FOXD1 dans les cellules BEAS-2B, SK-MES-1 et NCI-H226. (B) Analyse par qRT-PCR de trois ARN interférents ciblant FOXD1, 48 h après transfection. (C) Analyse par immunoblot des mêmes trois ARN interférents ciblant FOXD1. (D) Essai au kit de comptage cellulaire-8 après extinction de FOXD1. (E) Analyse de l'apoptose par annexine V–isothiocyanate de fluorescéine/iodure de propidium à 48 h. (F) Migration dans une chambre Transwell mesurée 24 h après la mise en culture des cellules transfectées ; les images archivées du champ observé sont présentées sans barre d'échelle rétrospective, car les métadonnées d'étalonnage étaient indisponibles. Trois expériences biologiques indépendantes ont été réalisées. *P < 0,05 ; **P < 0,01 ; ***P < 0,001. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
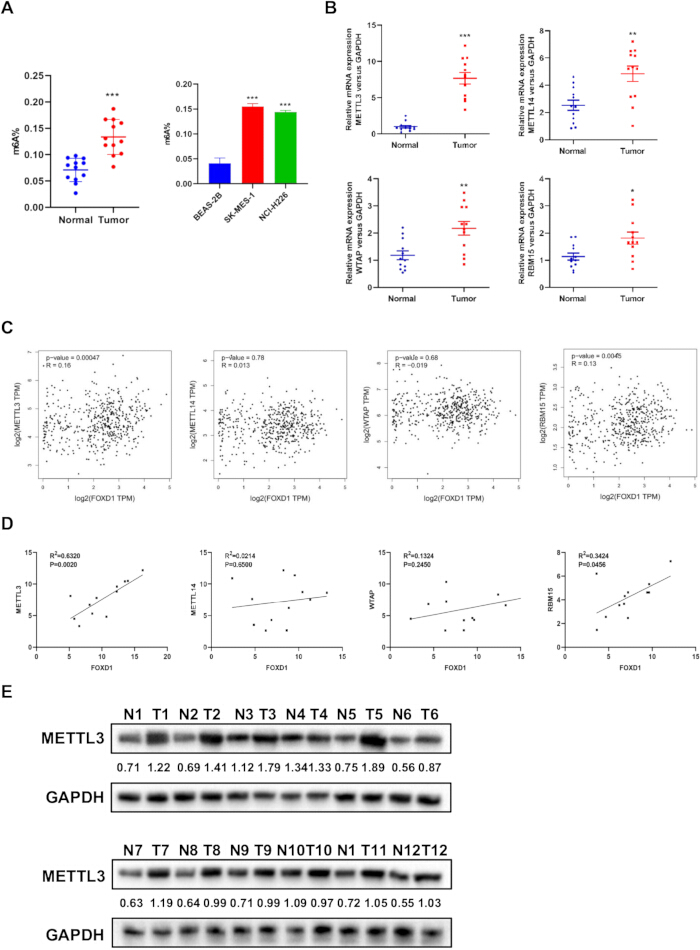
Figure 3 : Méthylation globale de l'adénosine en N6 et association entre METTL3 et FOXD1. (A) Signal global de m6A dans des tissus appariés ainsi que dans les cellules BEAS-2B, SK-MES-1 et NCI-H226. (B) Transcrits de METTL3, METTL14, WTAP et RBM15 dans 12 paires de tissus de CUSP et tissus adjacents. (C) Corrélations GEPIA entre FOXD1 et chaque enzyme « écrivain ». (D) Corrélations entre les transcrits de FOXD1 et ceux des enzymes « écrivains » dans 12 tumeurs de CUSP. (E) Protéine METTL3 dans des tissus de CUSP appariés et tissus adjacents. Nombre de paires de tissus humains = 12 ; les essais cellulaires représentent trois expériences biologiques indépendantes. *P < 0,05 ; **P < 0,01 ; ***P < 0,001. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
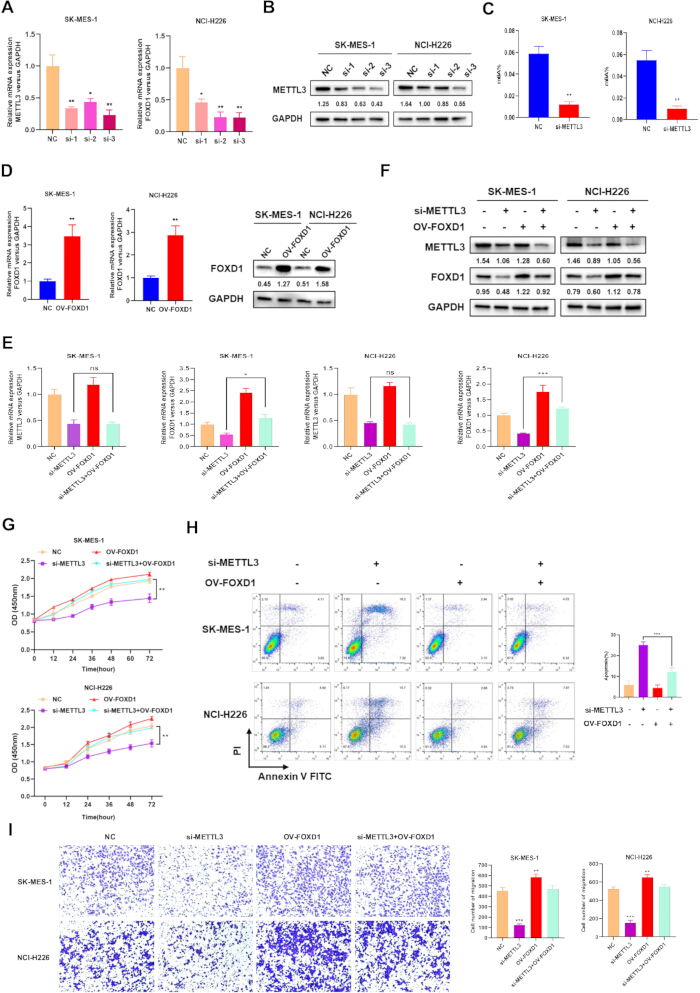
Figure 4 : Résultats de l'invalidation de METTL3, de la récupération par FOXD1 et des phénotypes des cellules LUSC. (A) Analyse par qRT-PCR de trois ARN interférents ciblant METTL3, 48 h après transfection. (B) Analyse par immunotransfert des mêmes trois ARN interférents ciblant METTL3. (C) Signal global de m6A après invalidation de METTL3. (D) Abondance des transcrits et des protéines FOXD1 après surexpression de FOXD1. (E) Abondance des transcrits de METTL3 et de FOXD1 dans les conditions contrôle, si-METTL3, ov-FOXD1, et si-METTL3 + ov-FOXD1 combinées, mesurée par qRT-PCR. (F) Abondance protéique de METTL3 et de FOXD1 dans les mêmes groupes de récupération, mesurée par immunotransfert. (G) Essai au kit Cell Counting Kit-8. (H) Apoptose analysée par cytométrie en flux. (I) Migration dans une chambre Transwell. Trois expériences biologiques indépendantes ont été réalisées. Les nombres situés sous les bandes de l'immunotransfert indiquent les rapports normalisés protéine ciblée/GAPDH. ns, non significatif ; *P < 0,05 ; **P < 0,01 ; ***P < 0,001. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
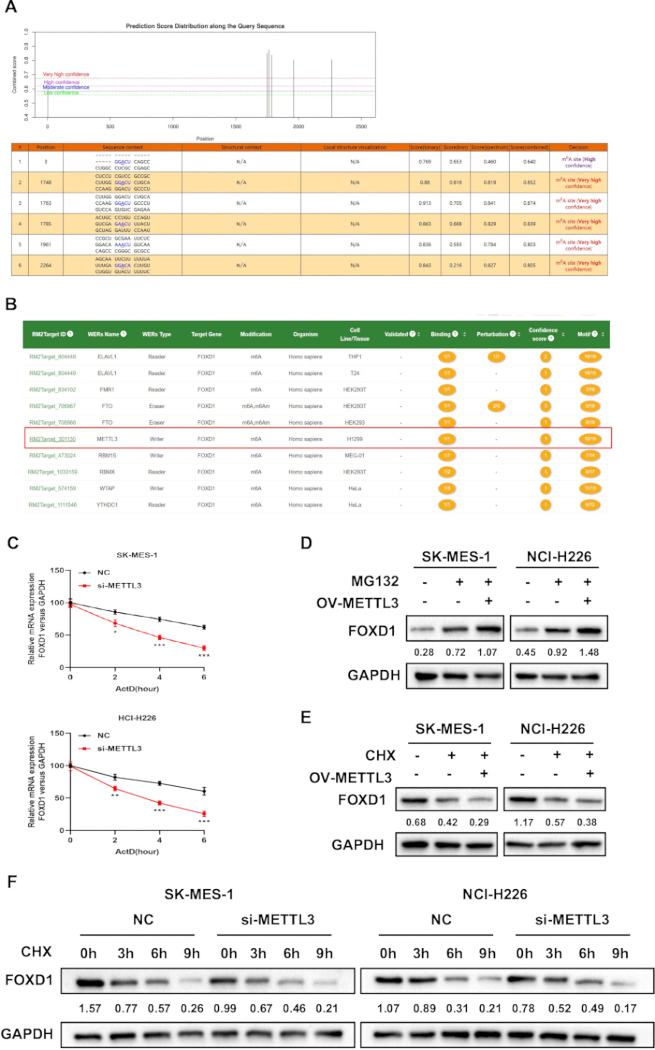
Figure 5 : METTL3 est associé à la régulation du transcrit et de la protéine FOXD1. (A) Sites de N6-méthyladénosine prédits par SRAMP dans le transcrit FOXD1. (B) Prédiction par m6A2Target identifiant METTL3 comme un écrivain candidat associé à FOXD1. (C) Abondance relative duARNm FOXD1 après traitement à l'actinomycine D à 5 µg/mL dans des cellules contrôle négatif et des cellules avec inhibition de METTL3, aux temps 0 h, 2 h, 4 h et 6 h. (D) Abondance de la protéine FOXD1 dans des cellules contrôle vecteur non traitées, dans des cellules contrôle vecteur traitées au MG132, et dans des cellules surexprimant METTL3 traitées au MG132 (10 µM MG132). (E) Abondance de la protéine FOXD1 dans des cellules contrôle vecteur non traitées, dans des cellules contrôle vecteur traitées au CHX, et dans des cellules surexprimant METTL3 traitées au CHX (20 µM CHX). (F) Expression protéique de FOXD1 après traitement au CHX à 20 µM pendant 0 h, 3 h, 6 h et 9 h dans des cellules contrôle négatif et des cellules avec inhibition de METTL3. GAPDH a servi de contrôle de chargement. Les expériences cellulaires ont été réalisées en trois réplicats biologiques indépendants. Les immunoblottings présentés sont représentatifs ; les nombres sous les bandes indiquent les rapports normalisés FOXD1/GAPDH. *P < 0,05 ; **P < 0,01 ; ***P < 0,001. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
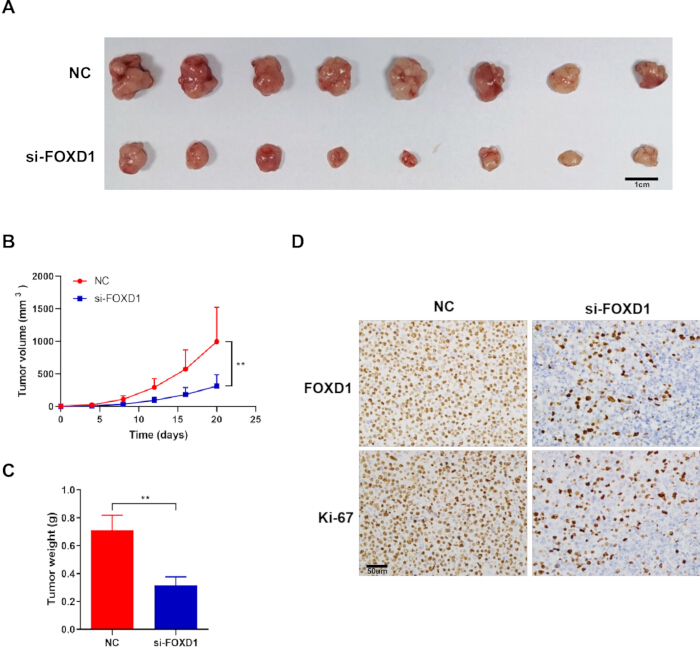
Figure 6 : L'extinction de FOXD1 supprime la croissance du xénogreffe SK-MES-1. (A) Tumeurs excisées provenant des groupes contrôle négatif et avec extinction de FOXD1 ; échelle = 1 cm. (B) Croissance tumorale mesurée tous les 4 jours pendant 20 jours, à compter d'une semaine après l'implantation, avec prélèvement au jour 27 après inoculation. (C) Poids tumoral au moment du prélèvement. (D) Exemples représentatifs d'immunohistochimie pour FOXD1 et Ki-67 dans le tissu de xénogreffe ; échelle = 50 µm. n = 8 souris par groupe ; **P < 0,01. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
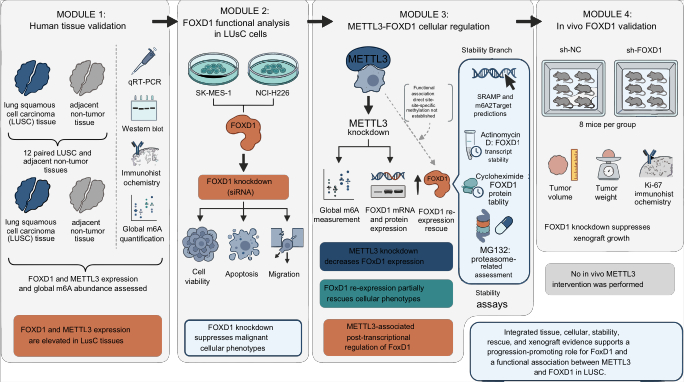
Figure 7: Conception générale de l'étude et limites des preuves. Des tissus appariés de CUPSC (n = 12 paires) et des lignées cellulaires ont été utilisés pour le profilage de FOXD1, de METTL3 et de la m6A globale ; des perturbations génétiques et des expériences de complémentation ont été suivies d'essais de viabilité, d'apoptose, de migration et de stabilité. Un modèle de xénogreffe avec extinction de FOXD1 (n = 8 souris par groupe) a été suivi pendant 20 jours. Le schéma distingue les preuves cellulaires relatives à METTL3 de celles spécifiques à FOXD1 in vivo des preuves et identifie la liaison directe, spécifique au site, de la m6A, l'identité du lecteur et in vivo L'activité de METTL3 n'a pas été testée. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Gène | Sens | Séquence (5′–3′) |
| FOXD1 | Direct | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Inversé | CGGAATCGGACGCAAGTCTT |
| GAPDH | Direct | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Inversé | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Direct | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Inversé | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Direct | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Inversé | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Direct | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Inversé | CACTTAAAACACCGGCATTGG |
| WTAP | Direct | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Inversé | CTGCTGGACTTGCTTGAGGTAC |
Tableau 1 : Séquences des amorces de la réaction de transcription inverse-PCR quantitative. Les séquences sont indiquées dans le sens 5′–3′.
Discussion
Le protocole actuel soutient un rôle pour FOXD1 dans le CSCp au niveau de tissus appariés, de deux lignées cellulaires et d'un modèle de xénogreffe. FOXD1 était plus élevé dans les échantillons tumoraux et les cellules de CSCp, et sa diminution a réduit la viabilité et la migration tout en augmentant l'apoptose. Ces résultats sont conformes aux rapports associant FOXD1 à la croissance, à l'invasion, à la résistance thérapeutique et à des issues défavorables dans plusieurs cancers 10,11,12,13,21,22,23,24,25,26,27,28. Ils prolongent également les observations antérieures sur le CSCp en reliant des phénotypes cellulaires à une expérience de xénogreffe avec inhibition de FOXD1.
Les analyses appariées de tissus et de cellules ont en outre associé l'abondance de FOXD1 à METTL3 et au taux global de m6A. Quatre gènes « écrivains » étaient surexprimés dans les 12 paires de tumeurs, mais METTL3 présentait la corrélation positive la plus forte avec FOXD1. Dans des cellules en culture, l'épuisement de METTL3 a réduit le taux global de m6A ainsi que l'abondance de FOXD1, et la réexpression de FOXD1 a partiellement restauré la viabilité, l'apoptose et les phénotypes de migration associés. Ces données soutiennent une relation fonctionnelle entre METTL3 et FOXD1 dans les cellules testées, en accord avec l'influence étendue de la régulation du m6A sur les phénotypes malignes29,30,31,32,33,34,35,36.
Plusieurs points du protocole sont importants pour la reproductibilité. L'efficacité de l'extinction doit être confirmée dans chaque lignée cellulaire avant les tests fonctionnels, et les conditions de complémentation doivent vérifier la restauration de FOXD1 sans interpréter le vecteur comme une surexpression de METTL3. Les traitements à l'actinomycine D, au CHX et au MG132 doivent utiliser les concentrations et les temps d'échantillonnage indiqués dans le protocole. La densité cellulaire, le gradient de sérum et un champ d'imagerie constant doivent être contrôlés lors des essais Transwell. Si un chercheur adapte le protocole, un ARN court hairpin stable ou l'édition du génome peut être préférable pour des expériences in vivo de longue durée, mais ces alternatives nécessitent une validation indépendante.
L'étude présente plusieurs limites. La cohorte humaine comprenait 12 échantillons appariés et n'était pas conçue pour la modélisation des résultats. Un seul ARN interférent petit sélectionné a été utilisé dans les tests fonctionnels, de sorte qu'une validation indépendante de l'effet hors cible n'a pas été réalisée. L'interprétation des immunoblottings est limitée aux valeurs normalisées présentées dans les figures ; aucun test inférentiel a posteriori n'a été effectué. Les prédictions de SRAMP et de m6A2Target, les mesures globales de m6A et les tests de stabilité ne remplacent pas l'immunoprécipitation d'ARN, l'immunoprécipitation d'ARN méthylé, la mutagenèse dirigée ou la récupération spécifique aux lecteurs. METTL3 n'a pas été altéré in vivo, de sorte que les données d'xénogreffe ne permettent pas d'étayer une affirmation concernant METTL3 in vivo.
Des études futures devraient tester l'inhibition pharmacologique de METTL3, cartographier les sites d'ARNm de type m6A associés à FOXD1 ainsi que sa liaison directe, identifier la protéine lecteur pertinente et répéter la stratégie de sauvetage in vivo. Un cohorte plus vaste, annoté indépendamment, serait également nécessaire pour évaluer les résultats cliniques. Dans le cadre de sa portée actuelle, l'étude soutient l'implication de FOXD1 comme régulateur fonctionnel du LUSC et fournit des preuves cellulaires que METTL3 influence l'abondance de FOXD1 ; elle n'établit toutefois pas une voie complète METTL3-m6A-lecteur-FOXD1.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun conflit d’intérêts.
Auteur Contributions :
D.A. et Q.D. ont contribué à la collecte des données et à l'acquisition des informations cliniques. K.W. et S.F. ont réalisé les expériences de biologie moléculaire et l'analyse des données. L.G. a participé à la conception de l'étude et à l'interprétation des données. H.Z. a effectué les analyses statistiques et a aidé à la validation des données. Y.S. a mené les expériences sur les animaux et l'analyse immunohistochimique. Q.P. a contribué aux essais de migration et aux ressources expérimentales. G.L. a conçu et supervisé l'étude, ainsi que rédigé le manuscrit. Tous les auteurs ont relu, révisé et approuvé le manuscrit.
Remerciements
Les auteurs remercient Zhe Tang et Yan Zhang pour leur assistance technique respective concernant la réaction en chaîne par polymérase quantitative et le western blot, ainsi que Yang Li pour son aide dans les tests de viabilité cellulaire et d'apoptose. Cette recherche a été financée par la Fondation des sciences naturelles de la région autonome du Tibet (n° XZ202001ZR0040G).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Système 7500 Fast Real-Time PCR | Applied Biosystems | 7500 Fast | qRT-PCR (RRID : SCR_018051) |
| Actinomycine D | Sigma-Aldrich | SBR00013 | Dosage de stabilité de l'ARN, 5 µg/mL |
| Kit d'apoptose Annexine V-FITC/PI | BD Biosciences | 556547 | Apoptose par cytométrie en flux |
| Souris nues athymiques BALB/c | N/A | N/A | Xénogreffe sous-cutanée |
| BEAS-2B | Banque de cellules de l'Académie chinoise des sciences | https://www.cellosaurus.org/CVCL_0168 | Référence d'épithélium bronchique non tumoral ; RRID : CVCL_0168 |
| Kit Cell Counting Kit-8 | Beyotime | C0037 | Vitalité cellulaire |
| Violet de crésyl | N/A | N/A | Coloration Transwell, 10 min |
| Cycloheximide | MedChemExpress | HY-12320 | Dosages de stabilité des protéines, 20 µM |
| Kit de substrat DAB | N/A | N/A | Visualisation en immunohistochimie |
| Milieu de culture de Dulbecco modifié (DMEM) | Gibco | 11995065 | Culture cellulaire |
| Réactif de chimiluminescence amplifiée | Thermo Fisher Scientific | A38556 | Détection par immunobuvardage (Western blot) |
| Sérum de veau fœtal | Gibco | 10091148 | Culture cellulaire, 10 % |
| Cytomètre en flux | N/A | N/A | Mesure de l'apoptose |
| Anticorps anti-FOXD1 | Thermo Fisher Scientific | PA5-27142 | Immunobuvardage, dilution 1:1 000 ; immunohistochimie |
| Construct d'overexpression de FOXD1 | N/A | N/A | Récupération de FOXD1 |
| Anticorps anti-GAPDH | Cell Signaling Technology | 5174 | Témoin de charge en immunobuvardage, dilution 1:2 000 (RRID : AB_10622025) |
| GEPIA | Université de Pékin | http://gepia.cancer-pku.cn/ | Requêtes d'expression et de corrélation ; RRID : SCR_018294 |
| GraphPad Prism | GraphPad Software | Version 8 | Analyse statistique ; RRID : SCR_002798 |
| Immunoglobuline G anti-lapin conjuguée à la peroxydase de raifort | N/A | N/A | Immunobuvardage, 1 h à température ambiante |
| ImageJ | National Institutes of Health | https://imagej.nih.gov/ij/ | Quantification d'images de migration ; RRID : SCR_003070 |
| Anticorps anti-Ki-67 | N/A | N/A | Immunohistochimie sur xénogreffe |
| m6A2Target | Ressource web | http://m6a2target.canceromics.org/ | Association prédite entre régulateurs et cibles de m6A |
| Anticorps anti-méthyltransférase-like 3 | Proteintech | 15073-1-AP | Immunobuvardage, dilution 1:1 000 ; RRID : AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Dosage d'inhibition du protéasome, 10 µM |
| Dosage colorimétrique de la N6-méthyladénosine | Epigentek | P-9005-96 | Mesure globale de m6A |
| NCI-H226 | Banque de cellules de l'Académie chinoise des sciences | https://www.cellosaurus.org/CVCL_1544 | Modèle cellulaire de CUSP ; RRID : CVCL_1544 |
| Microscope Olympus | Olympus | Modèle non enregistré | Imagerie Transwell |
| Pénicilline-streptomycine | Gibco | 10378016 | Culture cellulaire, 1 % |
| Membre en fluorure de polyvinylidène | Merck | IPVH00010 | Transfert en immunobuvardage |
| Kit de réactifs de transcription inverse PrimeScript | Takara | RR037A | Synthèse d'ADN complémentaire |
| Projet R pour le calcul statistique | Fondation R | https://www.r-project.org/ | Analyse statistique ; RRID : SCR_001905 |
| Solution tampon de lyse RIPA (radioimmunoprécipitation assay) | Beyotime | P0013B | Extraction protéique |
| RNAiso Plus | Takara | 9108 | Extraction d'ARN |
| Réactifs d'ARNi | N/A | N/A | Diminution d'expression de FOXD1 et METTL3 ; siARN-1 sélectionné |
| SK-MES-1 | Banque de cellules de l'Académie chinoise des sciences | https://www.cellosaurus.org/CVCL_0630 | Modèle cellulaire et de xénogreffe de CUSP ; RRID : CVCL_0630 |
| SRAMP | Ressource web | http://www.cuilab.cn/sramp | Prédiction des sites candidats de m6A sur FOXD1 |
| Mélange maître PCR TB Green | Takara | RR820A | qRT-PCR |
| Réactif de transfection | N/A | N/A | Livraison d'ARNi et de plasmide |
| Inserts Transwell | N/A | N/A | Dosage de migration |
Références
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.