Nous présentons un protocole de microscopie de déplétion par émission stimulée en trois dimensions (STED 3D) combinant des tests d'absorption et une perturbation pharmacologique afin de visualiser le trafic des protéines membranaires dans des disques imaginaux d'ailes de Drosophila intacts, avec une super-résolution quasi-isotrope.
Article de méthode
Visualisation du trafic des protéines dans un contexte tissulaire complet à l’aide de la nanoscopie de super-résolution chez Drosophila
Dans cet article
Résumé
Résumé
La drosophile Drosophila melanogaster est largement utilisée pour étudier in vivo les voies de signalisation cellulaire et développementale conservées. De nombreuses voies de signalisation, notamment la voie de signalisation Wnt, dépendent d'événements strictement régulés de sécrétion, d'endocytose et de trafic intracellulaire. Toutefois, la visualisation de la dynamique des protéines associées aux membranes dans des tissus épithéliaux intacts, tels que les disques imaginaux des ailes, reste difficile en raison de la petite taille et de l'organisation dense et prismatique de ces cellules. Ici, nous présentons un protocole combinant la nanoscopie tridimensionnelle par émission stimulée de désexcitation (3D STED) avec des tests d'absorption et des perturbations pharmacologiques dans les disques imaginaux des ailes de Drosophila. Ce flux de travail permet une imagerie en super-résolution de la dynamique des protéines associées aux membranes au sein de l'architecture tissulaire intacte, avec une résolution quasi-isotrope. En prenant comme exemple des cellules sécrétant la protéine Wingless, nous visualisons la localisation et le trafic de Wingless (Wg) au niveau de la membrane apicale. Pour analyser les processus dynamiques de trafic, le flux d'imagerie est combiné à un test d'absorption qui marque sélectivement les protéines en cours de sécrétion et de réinternalisation pendant une fenêtre temporelle définie. En association avec des inhibiteurs chimiques et une visualisation par nanoscopie 3D STED, cette approche permet une analyse fonctionnelle de la dynamique du trafic membranaire. Ensemble, ce protocole fournit un cadre polyvalent pour l'étude de l'organisation membranaire et du trafic des protéines à une résolution subcellulaire dans des échantillons tissulaires entiers de Drosophila.
Introduction
La drosophile Drosophila melanogaster est un organisme modèle largement utilisé en biologie du développement, en évolution, en étude du comportement et en recherche biomédicale, notamment pour l'étude du cancer et d'autres maladies humaines1,2. De nombreuses voies de signalisation cellulaire fondamentales sont fortement conservées entre Drosophila et les vertébrés, ce qui rend ce système modèle particulièrement précieux pour l'étude de mécanismes biologiques conservés in vivo.
Dans ce protocole, le disque imaginal de l'aile de Drosophila est utilisé comme système modèle pour étudier la dynamique associée à la membrane dans la voie de signalisation Wingless (Wg)/Wnt. De nombreuses voies de signalisation du développement dépendent d'une sécrétion strictement régulée, d'une localisation membranaire, d'une endocytose et d'un trafic intracellulaire des molécules de signalisation3. C'est également le cas au niveau de la frontière dorsoventrale (DV) du disque imaginal, où Wg est sécrétée par les cellules productrices au niveau de la membrane apicale et transportée vers les cellules réceptrices voisines par des interactions avec des glypicanes4,5,6,7. Dans les cellules réceptrices, Wg se lie aux récepteurs Frizzled et active la signalisation Wnt en aval. En plus du pool de Wg qui est transporté loin de la frontière DV, une fraction de Wg est réinternalisée par les cellules productrices et acheminée à travers le système endosomal vers des destinations intracellulaires distinctes8,9,10. Les cellules productrices de Wg situées à la frontière DV constituent donc un excellent modèle pour étudier le trafic membranaire, la dynamique de sécrétion et les mécanismes cellulaires régulant l'activité de signalisation in vivo.
Cependant, l'architecture fortement columnaire des cellules épithéliales des disques imaginaux rend la visualisation difficile, nécessitant une résolution plus élevée et plus isotrope que celle que peut offrir la microscopie confocale conventionnelle afin de distinguer des vésicules individuelles. Pour surmonter ces limitations, nous avons optimisé les conditions de préparation des tissus, de marquage et d'imagerie pour la nanoscopie de super-résolution dans des tissus entiers de Drosophila. Plus précisément, nous avons mis au point un protocole pour la nanoscopie en épuisement stimulé en trois dimensions (3D STED) qui permet une visualisation orthogonale de la localisation des protéines associées à la membrane le long de l'axe apico-basal de l'épithélium11,12. La 3D STED convient particulièrement bien à cette application car elle offre une meilleure résolution axiale par rapport à la microscopie confocale conventionnelle, permettant ainsi la visualisation de structures subcellulaires fines dans des tissus densément compactés13,14. En utilisant cette approche, nous avons analysé la région de la membrane apicale des cellules sécrétant Wg au niveau de la frontière DV du disque imaginal de l'aile et détecté Wg à la membrane apicale aux côtés d'autres protéines associées à la membrane, telles que Discs large 1 (Dlg1) ou Evenness interrupted/Wntless (Evi/Wls).
Afin d’étudier plus en profondeur la dynamique du trafic des protéines, ce protocole d’imagerie a été combiné à un test d’absorption précédemment établi15. Ce test permet la détection sélective des protéines ayant subi une sécrétion suivie d’une ré-internalisation dans un intervalle de temps défini, visualisant ainsi un pool dynamique de protéines en transit à travers la membrane plasmique. Pour étendre son utilité, le test d’absorption a été associé à des perturbations pharmacologiques, permettant d’analyser l’influence de processus cellulaires spécifiques sur la dynamique du trafic membranaire. Ensemble, ces approches offrent un cadre puissant pour l’étude des mécanismes de trafic, de sécrétion et de signalisation des protéines dans leur contexte tissulaire d’origine, avec une résolution spatiale élevée.
En outre, le protocole est compatible avec un large éventail d'approches de coloration, y compris les protocoles d'immunofluorescence standards. L'incorporation de colorants fluorescents est également possible, élargissant davantage la gamme de structures cellulaires et de cibles moléculaires pouvant être visualisées. Dans tous les cas, les fluorophores doivent être choisis en fonction de leur compatibilité avec la nanoscopie STED. Bien que le présent protocole se concentre sur l'imagerie 3D STED en deux couleurs (rouge et rouge lointain), le flux de travail peut facilement être adapté à d'autres fluorophores et à d'autres configurations d'imagerie, augmentant ainsi sa flexibilité pour diverses applications expérimentales.
Pris ensemble, ce protocole établit un cadre polyvalent permettant de combiner la nanoscopie de super-résolution STED avec des approches de perturbation fonctionnelle dans des tissus entiers de Drosophila. Le flux de travail fournit une base pour des études futures visant à analyser l'organisation membranaire, le trafic des protéines et la dynamique des signaux à une résolution subcellulaire au sein d'environnements tissulaires complexes.
Protocole
1. Traitement par inhibiteur ex vivo combiné à un dosage d'absorption
REMARQUE : Se référer au Tableau des matériaux pour obtenir des informations détaillées sur les produits chimiques et les matériaux utilisés.
- Préparation du milieu et des solutions
- Préparer le milieu SchM+.
- Ajouter 4 % de sérum de veau fœtal (FBS) au milieu pour insectes de Schneider et mélanger soigneusement.
REMARQUE : Le milieu SchM+ doit être préparé frais le jour de l'expérience.
- Ajouter 4 % de sérum de veau fœtal (FBS) au milieu pour insectes de Schneider et mélanger soigneusement.
- Préparer 1× PBS-T
- Ajouter 0,1 % de Triton X-100 à 1× sérum physiologique tamponné au phosphate (PBS) et mélanger soigneusement.
- Préparer des solutions de composés chimiques.
ATTENTION : De nombreux composés chimiques suivants sont considérés comme cytotoxiques ; une manipulation prudente sous hotte aspirante, avec des équipements appropriés et une élimination correcte des déchets, est essentielle.- Dynasor2-24 : Dissoudre le Dynasor2-24 (également connu sous le nom de Dyngo-4a) dans du diméthylsulfoxyde (DMSO), selon les instructions du fabricant, afin de préparer une solution mère à 10 mM. Pour le traitement, diluer la solution mère 1:1000 ou 1:2000 dans du SchM+ pour obtenir des concentrations finales de 10 µM ou 5 µM, respectivement.
- Contrôle DMSO : diluer le DMSO au 1/1000 dans du SchM+ et utiliser 200 µL comme témoin négatif dans chaque expérience.
- Préparer un tampon acide pour le dosage de l'absorption.
- Préparer une solution de glycine 0,1 M dans de l’eau désionisée2O.
- Ajuster le pH à 3,5 à l'aide de HCl à 37 % (acide chlorhydrique).
- Préparer le milieu SchM+.
- Prélèvement des échantillons
- Maintenir les mouches à 25 °C avec un cycle lumière/obscurité de 12/12 h.
- Prélever les larves au stade L3 (stade larvaire 3) à l’aide de pinces depuis les flacons et les placer dans une plaque de coloration en verre à 12 puits, chaque puit contenant du SchM+.
REMARQUE : Préparez suffisamment de tissu pour inclure systématiquement des échantillons témoins dans chaque répétition expérimentale. - Ouvrir les larves à l'extrémité postérieure et les retourner.
- Retirer l'intestin et le corps adipeux du tissu larvaire inversé aussi complètement que possible, tout en maintenant le tissu immergé dans du SchM+.
- Ensuite, transférer le tissu dans un tube PCR de 0,2 mL contenant du SchM+.
REMARQUE : nous plaçons uniquement 6 à 7 larves inversées par tube de réaction en chaîne par polymérase (PCR) afin d'assurer une immersion complète et un mouvement libre du tissu.
REMARQUE : Il faut éviter de trop remplir le tube avec le tissu afin de prévenir les artéfacts lors de la coloration. Se référer à la Table des matériels pour des informations détaillées sur les produits chimiques et les matériaux utilisés dans cette étude.
- Ex vivo traitement par inhibiteur et dosage de l'absorption
- Retirer le milieu SchM+ de l'échantillon.
- Ajouter la solution du composé chimique préparée précédemment selon les besoins, par exemple, 200 µL de 5 µM Solution Dynasor2-24
ATTENTION : Ces composés chimiques sont considérés comme cytotoxiques, et une manipulation prudente sous hotte aspirante, avec un équipement approprié et une élimination des déchets conforme, est essentielle. - Ajouter 200 µL de solution de DMSO (1:1000) à l'échantillon témoin, servant de contrôle négatif.
- Pour le test d'absorption (Witte et al., 202115), ajouter l'anticorps primaire à la solution de médicament : utiliser l'anti-Wg à une dilution de 1:20 pour la détection de Wg, et l'anti-GFP pour la détection de protéines marquées par la protéine fluorescente verte (GFP), à une dilution de 1:40.
- Incuber les échantillons à température ambiante (TA) pendant 90 min à l'abri de la lumière.
REMARQUE : Le test d'absorption est facultatif et peut facilement être omis dans le protocole s'il n'est pas nécessaire. D'autres composés chimiques peuvent également être utilisés selon la question expérimentale. Il est recommandé de titrer le composé afin de déterminer la concentration optimale pour chaque application spécifique. Se référer à la Table des matériels pour des informations détaillées sur les produits chimiques et les matériaux utilisés dans cette étude.
- Fixation de l'échantillon
- Retirer rapidement la solution de coloration de l'étape 1.3 dès la fin du temps d'incubation.
- (Facultatif) Rincer les échantillons deux fois avec 200 µL de SchM+
- Pour une élimination adéquate de l'anticorps primaire de l'essai de prise en charge, laver le tissu pendant 5 min avec le tampon acide à température ambiante (TA).
- Laver rapidement 3 fois× pendant 3 min avec SchM+
- Fixer les échantillons dans du formaldéhyde 4 % dans SchM+ pendant 30 min à température ambiante.
- Incubation avec l'anticorps primaire
REMARQUE : Si un anticorps primaire supplémentaire est nécessaire en complément de l'anticorps utilisé dans le test d'absorption, il doit être appliqué à ce stade et traité selon les procédures standards de coloration en immunohistochimie.- Bloquer le tissu avec 4 % de sérum de chèvre normal dans 1× PBS-T pendant au moins 30 min à température ambiante sous agitation douce.
- Éliminer la solution de blocage.
- Ajouter la solution d'anticorps primaire dans 1× PBS à la concentration souhaitée (exemples : anti-wg à 1:200, anti-dlg1 à 1:50 ou anti-GFP à 1:200, ou tout autre anticorps requis)
- Incuber les échantillons à 4 °C pendant la nuit avec agitation douce.
- (Facultatif) Incuber l'anticorps primaire pendant au moins 1,5 h à température ambiante sous agitation douce.
- REMARQUE : Se référer au Table des matériels pour des informations détaillées sur les produits chimiques et les matériaux utilisés dans cette étude.
- Incubation avec l'anticorps secondaire
- Retirer la solution d'anticorps primaire.
REMARQUE : Utiliser la solution d'anticorps primaire dans 1× Le PBS peut être réutilisé plusieurs fois s'il est conservé dans un tube à réaction neuf de 1,5 mL à 4 °C. - Laver le tissu 3 fois× 10 min à 1× PBS-T sous agitation douce.
Ajouter les anticorps secondaires souhaités à une dilution de 1/200 dans 1× PBS-T avec coloration nucléaire de contre-teinture Hoechst33342 à 1:2000. Les anticorps secondaires pour la microscopie STED comprennent l'anticorps anti-souris provenant de poulet conjugué à l'Alexa Fluor 594, l'anticorps anti-lapin provenant de chèvre conjugué à l'Alexa Fluor 594, l'anticorps anti-lapin STAR635P provenant de chèvre et l'anticorps anti-souris STAR635P provenant de chèvre. Se référer à la Table des matériels pour des informations détaillées sur les produits chimiques et les matériaux utilisés dans cette étude. - Incuber avec l'anticorps secondaire toute la nuit à 4 °C (Facultatif : incuber au moins 1,5 h sous agitation douce à température ambiante).
- Laver le tissu le lendemain, 3 fois× 10 min à 1× PBS-T sous agitation douce. Les échantillons sont désormais prêts à être montés pour l'imagerie STED. Voir l'ensemble du protocole Figure 1.
REMARQUE : Les optiques de microscope sont généralement conçues pour 23 °C fonctionnement, sauf si d'autres conditions sont requises. La stabilité thermique est cruciale, car les fluctuations entraînent une dérive thermique et peuvent affecter la synchronisation du laser. Une température ambiante stable comprise entre 20 et23 °C (≤ ±±1 °C des fluctuations) est recommandé16., avec 21,5–22 °C compensant souvent la chaleur produite par le microscope. Tous les composants du microscope doivent atteindre un équilibre thermique avant l'acquisition d'images. Les incubateurs montés sur la platine offrent un contrôle précis de la température de l'échantillon, mais les enceintes peuvent emprisonner la chaleur et augmenter la dérive. Un refroidissement actif améliore la stabilité. Dans cette étude, un incubateur sur mesure (EMBL Heidelberg) a permis de maintenir une température de 21,5 ±± 0.05 °C, en minimisant la dérive thermique et en assurant une performance stable de la microscopie STED en 3D.
- Retirer la solution d'anticorps primaire.
2. Préparation de l'échantillon pour la nanoscopie 3D STED à super-résolution et l'acquisition d'images
- Préparation du matériel et des équipements :
- Configurer le microscope.
- Veiller à utiliser un microscope adapté à l'expérience. Ici, le microscope Leica Stellaris 8 STED Falcon a été utilisé.
- Utiliser un objectif approprié. Ici, l'objectif HC PL APO 86x/1.20 W motCORR STED white a été utilisé.
- Pour permettre une imagerie correcte, allumer l'ensemble du système de microscope au moins 2 h avant l'imagerie (voir la NOTE après l'étape 1.6.4).
- Préparer des boîtes revêtues de poly-L-lysine.
- Préparer une solution de poly-L-lysine contenant 0,6 % de poly-L-lysine et 0,002 % de Photo Flo dans de l’eau distillée (dH2O). Aliquoter la solution et la conserver à long terme à -20 °C. Après décongélation, la conserver à 4 °C et la réutiliser jusqu’à 10 fois.
- Ajouter 200 µL de solution de poly-L-lysine sur le fond en lame de verre 1.5H d’un µ-bécher (∅35 mm).
- Placer les boîtes en position inclinée verticalement pour le séchage.
- Une fois la solution de poly-L-lysine complètement sèche, répéter le revêtement une fois supplémentaire.
- Ajouter soigneusement des entretoises en vernis à ongles sur deux côtés du fond en lame de verre.
- Après montage, recouvrir les échantillons de lames rondes 1.5H (∅12 mm) (voir Figure 2).
- Configurer le microscope.
- Configuration du montage pour la STED 3D
- REMARQUE : Pour la nanoscopie STED 3D (voir la NOTE après l'étape 2.2.12), il est essentiel d’ajuster les indices de réfraction entre l’objectif STED et le milieu de montage (exemple ici : objectif à immersion dans l’eau et milieu de montage PBS 1×).
- Placer les échantillons dans une petite boîte de Pétri remplie de PBS 1×.
- Ajouter 15 µL de PBS 1× sous forme de goutte sur la boîte préalablement revêtue de poly-L-lysine.
- Disséquer les disques imaginaux des ailes à partir du tissu larvaire restant et les placer dans une goutte de 15 µL de PBS 1×.
- S’assurer que les disques d’aile adhèrent au fond revêtu et ne flottent pas.
- Ne pas appuyer sur les disques avec une force quelconque ; les laisser descendre délicatement vers la lame. Pour une orientation correcte, veiller à ce que les disques d’aile soient montés avec la membrane péripodale orientée vers le bas, en contact avec la lame.
- Après montage, recouvrir les échantillons de lames rondes 1.5H (∅12 mm).
- S’assurer que les bords de la lame reposent sur les entretoises en vernis à ongles préalablement appliquées afin d’éviter d’écraser l’échantillon.
- Sceller la lame sur tous ses côtés avec du vernis à ongles pour éviter l’évaporation du milieu de montage.
- Conserver les boîtes à l’abri de la lumière jusqu’à l’imagerie finale.
- Régler la température de l’échantillon à celle de la chambre d’incubation du microscope en plaçant l’échantillon dans la chambre d’incubation au moins 30 min avant l’imagerie.
- Pour éviter tout mouvement de l’échantillon, stabiliser la boîte dans le porte-échantillon du microscope à l’aide d’un adhésif sensible à la pression (par exemple, Blu Tack).
NOTE : Les termes STED 2D et STED 3D décrivent le type d’amélioration de la résolution, et non le fait qu’une seule image ou une pile en z soit acquise12,17. La STED 2D améliore uniquement la résolution latérale (x,y), généralement jusqu’à <50 nm, tandis que la résolution axiale (z) reste similaire à celle de la microscopie confocale (~600 nm). Elle est relativement robuste et tolère généralement un appariement imparfait des indices de réfraction entre l’échantillon et le milieu d’immersion de l’objectif12. La STED 3D améliore à la fois la résolution latérale et axiale, avec une amélioration particulièrement marquée selon l’axe z. En optimisant les conditions de fluorophore et de déplétion STED, une résolution quasi isotrope de ~100-120 nm peut être atteinte dans des échantillons biologiques17,18. Toutefois, le motif de déplétion STED 3D est très sensible aux aberrations sphériques. Une imagerie réussie nécessite donc un appariement précis des indices de réfraction et un réglage minutieux du collier de correction de l’objectif en fonction de l’épaisseur réelle de la lame.
- Exigences et configuration pour la nanoscopie
- Allumer tous les dispositifs du microscope nécessaires conformément aux instructions du fabricant.
- Ne pas encore allumer les clés des lasers.
- Régler la température de la chambre d’incubation du microscope à 22–23 °C au moins 1,5 h avant l’imagerie.
- Placer également l’échantillon dans la chambre du microscope et lui permettre de s’ajuster à la température pendant au moins 30 min.
- Allumer l’ordinateur et ouvrir le logiciel LAS X (version 4.9.0).
- Sélectionner Imagerie STED dans la fenêtre d’ouverture et démarrer le logiciel.
- Lorsque le logiciel est chargé, tourner les clés de sécurité des deux lasers lorsque leurs voyants sont verts.
- Accéder à l’onglet Acquérir et sélectionner l’objectif STED approprié (HC PL APO 86x/1.20 W motCORR STED).
- Accéder à l’onglet Configuration et cliquer sur le bouton Configuration du laser.
- Cliquer sur tous les curseurs de laser pour les mettre ON.
- Accéder à l’onglet Configuration et cliquer sur le bouton STED.
- Cliquer sur Aligner les faisceaux.
- Répéter l’alignement des faisceaux après 30 min et 2 h d’imagerie pour garantir un alignement optimal – répéter ultérieurement si nécessaire, par exemple en cas de baisse de résolution ou d’augmentation du bruit de fond.
- Aligner le collier de correction (motorisé) de l’objectif à l’épaisseur de la lame à l’aide du signal de réflexion de la surface de la lame :
- Accéder à l’onglet Acquérir et commencer à régler la valeur motCORR.
- Créer un nouveau canal pour la fluorescence GFP en mode confocal et focaliser sur les cellules de l’échantillon.
- Cliquer sur le bouton Direct et déplacer l’échantillon vers une position sans échantillon.
- Arrêter l’imagerie en direct.
- S’assurer que seul le détecteur HyDS est utilisé pour ce canal.
- Régler la configuration du Filtre coupe-bande sur Réflexion.
- Cliquer sur le bouton Orientation et sélectionner Orientation xzy.
- Réduire la vitesse d’imagerie rapide en direct à 100 Hz si l’échantillon apparaît instable ou présente un mouvement selon l’axe z.
- Démarrer l’imagerie en direct en cliquant sur le bouton Direct rapide.
- Trouver la lame de l’échantillon, qui apparaîtra sous forme d’une ligne.
- Régler la valeur motCORR jusqu’à ce que le signal de cette ligne soit aussi net et étroit que possible
NOTE : Avec une lame 1.5H, la valeur se situe généralement entre 48 et 56 %. - Commencer maintenant à sélectionner les canaux pour l’imagerie dans l’onglet Acquérir.
- Se référer au Tableau 1 pour les réglages de détection d’Alexa Fluor 594 et de STAR635P en mode STED.
- Imagerie
- Sélectionner la zone d’imagerie à l’aide des oculaires du microscope.
- Rotation soigneuse de l’échantillon pour aligner verticalement la limite DV (Figure 2).
- Fermer l’obturateur du microscope et passer en imagerie confocale, en pilotant le microscope via l’ordinateur.
- Cliquer sur le bouton Direct rapide, ajuster la mise au point et vérifier l’orientation de la limite DV.
- Arrêter l’imagerie en direct.
- (Facultatif) Acquérir une image d’ensemble en orientation xyz en mode confocal (régler le laser STED à 0 % dans les deux canaux) pour référence ultérieure à ce stade. Réactiver le laser STED après l’acquisition de l’image d’ensemble.
- Sélectionner l’orientation xzy et ajuster la ligne visible à la zone exacte pour l’imagerie orthogonale.
- Cliquer sur le bouton Direct rapide et ajuster la mise au point si nécessaire.
- Ajuster la position x de l’échantillon à l’aide de la molette z du microscope.
- S’assurer que les lasers STED sont activés pour les deux canaux et que tous les réglages sont corrects.
- Cliquer sur Démarrer l’expérience.
- L’intensité par pixel (détecteur en mode comptage de photons) se situe entre 50 et 300 photons détectés ; cela dépend également de la puissance du laser, du temps de séjour par pixel et du nombre d’accumulations de lignes appliquées. Si le module de mesure de durée de vie de fluorescence (FLIM) (Falcon) est disponible, vérifier qu’il y a moins d’un photon détecté par impulsion laser.
- Ajuster les valeurs selon les besoins spécifiques à chaque échantillon.
- Difficultés rencontrées en nanoscopie STED
- Pour visualiser une zone morphologique spécifique en STED 3D, tourner et orienter l’échantillon au microscope afin d’aligner précisément le tissu avec l’axe requis avant de passer de la vue XY à la vue XZ. Cette liberté est possible grâce au montage sur des boîtes rondes qui peuvent être déplacées selon les besoins expérimentaux (Figure 2).
- Pendant le balayage xz, l’échantillon est physiquement déplacé selon l’axe z, ce qui a initialement provoqué un léger déplacement de la boîte selon xy en raison des oscillations selon l’axe vertical. Pour éviter tout mouvement de la boîte, fixer celle-ci sur le porte-échantillon du microscope à l’aide d’une pâte de montage (Blu Tack). Cela permet une rotation libre tout en empêchant les mouvements verticaux (selon l’axe z).
- Pour éviter l’évaporation du milieu de montage et le dessèchement du tissu, les lames ont été scellées avec du vernis à ongles.
- Pour éviter la dérive de l’échantillon due aux différences de température entre l’échantillon et le microscope, amener les échantillons dans la chambre d’incubation du microscope au moins 30 min avant l’imagerie et leur permettre de s’ajuster à la température du microscope16.
- Pour le choix de l’anticorps secondaire, suivre les étapes ci-dessous :
- Un large éventail de fluorophores convient à l’imagerie STED, mais seul un sous-ensemble combine des propriétés photophysiques et spectrales favorables pour une imagerie STED en deux couleurs utilisant un seul laser de déplétion (ici, 775 nm). Utiliser une longueur d’onde de déplétion STED unique pour les deux fluorophores afin d’assurer un alignement chromatique intrinsèque et d’éviter la nécessité d’une correction du décalage chromatique en définissant les deux canaux avec le même motif de déplétion STED.
- Les paires courantes de fluorophores incluent STAR RED/STAR635P, ATTO 647N/ATTO 643, combinées à Alexa Fluor 594, STAR 580 ou STAR ORANGE18,19. Ici, la combinaison largement adoptée d’Alexa Fluor 594 et de STAR635P a été utilisée. Bien que leurs spectres d’émission se chevauchent partiellement, acquérir les fluorophores en mode ligne par ligne en utilisant une fenêtre de détection étroite pour Alexa Fluor 594 afin de minimiser les interférences (voir Tableau 1). Comme cela réduit l’efficacité de détection d’Alexa Fluor 594, attribuer la coloration immunologique la plus intense à ce canal.
Résultats
Pour établir des conditions d'imagerie adaptées à la nanoscopie 3D en STED dans les disques imaginaux des ailes, nous avons d'abord réalisé une coloration immunofluorescente classique de Wg et de la protéine associée à la membrane apicale Dlp. Wg a été détecté à l'aide d’Alexa Fluor 594, tandis que Dlp a été marqué avec STAR635P, deux fluorophores compatibles avec la nanoscopie STED (Figure 3). Les images ont été acquises à la fois sans appauvrissement STED afin d'obtenir des images de qualité confocale, et avec appauvrissement STED pour l'imagerie en super-résolution, en utilisant les paramètres décrits à l'étape 2.3 (Figure 3).
La comparaison directe de la même région tissulaire imagée en conditions confocale et STED sous forme de sections xz a démontré l'augmentation substantielle de la résolution spatiale offerte par la nanoscopie STED en 3D (Figure 3A–D′). Des structures qui apparaissaient comme des signaux allongés sur les images confocales (Figure 3A,A′ et Figure C,C′) ont été résolues en plusieurs ponctuations distinctes en mode STED (Figure 3B,B′ et Figure D,D′). Cette amélioration a été observée aussi bien dans les canaux Alexa Fluor 594 que STAR635P, et a permis d'optimiser les paramètres de marquage et d'imagerie afin d'obtenir la qualité de signal maximale possible ainsi qu'une résolution isotrope dans le tissu intact de disque wing.
Ensuite, nous avons combiné le test d'absorption de Wg15 à une inhibition pharmacologique afin d'étudier le trafic de Wg au niveau de la membrane apicale et son recyclage via l'endocytose dépendante de la clathrine. Nous avons utilisé une lignée de drosophiles avec une étiquette endogène Wg::GFP20, permettant la détection de Wg::GFP extracellulaire à l'aide d'un anticorps anti-GFP tout en conservant la compatibilité avec d'autres anticorps dérivés de souris.
Les disques imaginaux des ailes ont été traités avec le Dynasore 2-24, un inhibiteur de la dynamine ciblant l'endocytose dépendante de la clathrine et de la dynamine21,22, puis soumis à un test de prise en charge de Wg. La protéine Wg::GFP extracellulaire a été marquée à l'aide d'un anticorps anti-GFP afin de suivre son internalisation, tandis que la coloration par un anticorps anti-Dlg1 a permis de visualiser la morphologie du tissu. La détection de Wg a été réalisée avec l’Alexa Fluor 594 et l’imagerie en mode STED, alors que Dlg1 a été marqué avec le STAR635P (Figure 4). Les disques contrôles traités au DMSO ont montré une internalisation progressive de Wg::GFP tout au long du test de prise en charge, avec un signal endocyté détecté jusqu’à une profondeur d’environ 14 µm (Figure 4A,A′). L’expérience a été répétée indépendamment deux fois selon les protocoles décrits aux sections 1 et 2 (Figure 4B,C). Dans la première réplication, le traitement avec 5 µM de Dynasore2-24 a complètement aboli la prise en charge de Wg (n = 4 ; Figure 4B,B′). Dans la seconde réplication, l’internalisation de Wg a été réduite mais non éliminée (n = 4 ; Figure 4C,C′), la profondeur maximale de pénétration étant diminuée à environ 5 µm.
Une telle variabilité est couramment observée dans les expériences d'inhibition pharmacologique et reflète probablement des différences d'efficacité ou de chronologie de l'inhibiteur. Une inhibition incomplète, une pénétration limitée de l'inhibiteur dans le tissu, une récupération de l'endocytose durant le dosage, ou des retards introduits par les étapes de lavage acide et de fixation peuvent tous contribuer à une internalisation résiduelle de Wg. Néanmoins, les deux expériences ont montré de manière constante une réduction marquée de l'absorption et de la profondeur de pénétration de Wg par rapport aux témoins DMSO, démontrant ainsi une inhibition réussie de l'endocytose. Ces résultats soulignent également que le respect précis du chronogramme tout au long du protocole est essentiel pour obtenir des résultats reproductibles.
Un signal résiduel associé à la membrane après le retrait acide a été parfois observé et représente probablement des molécules de Wg::GFP qui étaient déjà entrées dans des puits endocytiques précoces et étaient donc inaccessibles à l'élimination des anticorps23,24,25.
Ensemble, ces expériences démontrent que la combinaison du test d'absorption de Wg avec une perturbation pharmacologique et la nanoscopie 3D STED permet de visualiser la dynamique du trafic membranaire dans des disques imaginaires de l'aile intacts. Elles identifient en outre des paramètres clés pour une mise en œuvre réussie du protocole, notamment des combinaisons appropriées d'anticorps et de fluorophores, un traitement optimal avec des inhibiteurs, un respect strict du chronométrage du test d'absorption et un montage immédiat des échantillons avant l'imagerie.
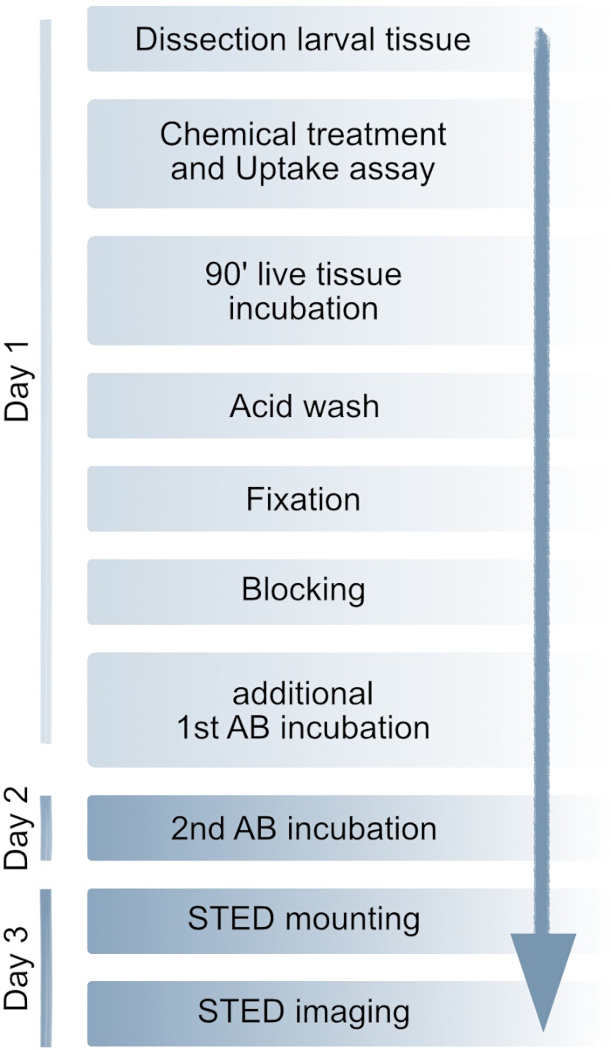
Figure 1 : Flux méthodologique. Le protocole complet peut être réalisé en trois jours. Si souhaité, l'incubation avec l'anticorps secondaire peut être effectuée le même jour. Des procédures détaillées sont fournies dans la section Protocole. AB : anticorps. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
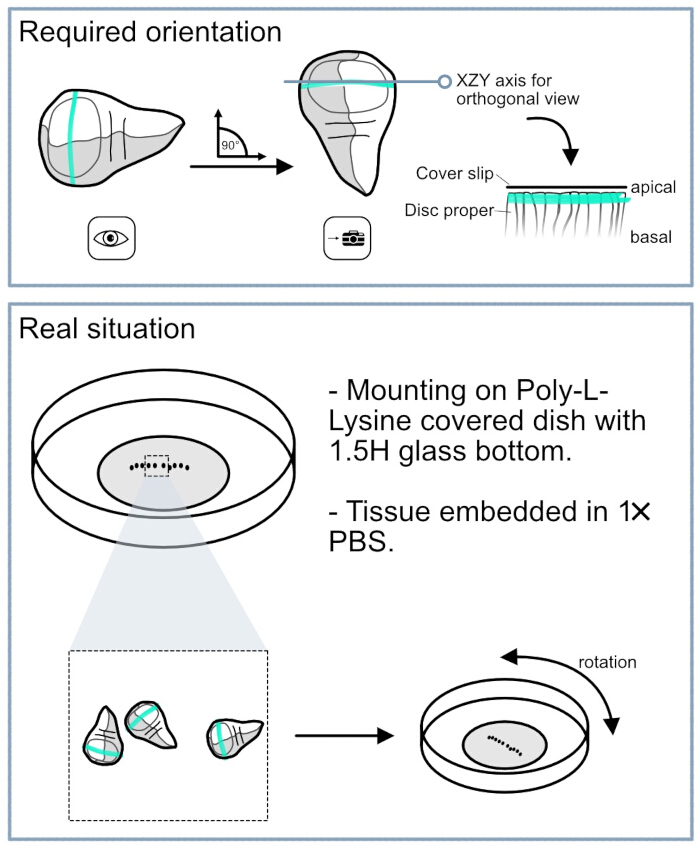
Figure 2 : Difficultés liées au montage des disques wing de Drosophila pour la microscopie STED en 3D. Le panneau supérieur illustre l'orientation requise des disques wing. Pour l'analyse des cellules sécrétant Wg, il est essentiel que la limite DV soit parfaitement alignée verticalement dans le champ visuel de l'oculaire. Cet alignement permet de faire pivoter la vue de la caméra vers le plan orthogonal, ce qui permet de cibler précisément la population cellulaire souhaitée. Le panneau inférieur montre le dispositif pratique utilisé pour manipuler les disques wing pendant l'observation. Les disques wing ont été montés dans des boîtes de Pétri rondes munies d'un fond en lame de verre 1.5H. La surface de la lame a été recouverte de poly-L-lysine afin de faciliter l'attachement du tissu. La forme circulaire de la boîte permet une rotation dans le porte-objet du microscope, ce qui permet un alignement vertical précis de la limite DV, nécessaire pour l'imagerie. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
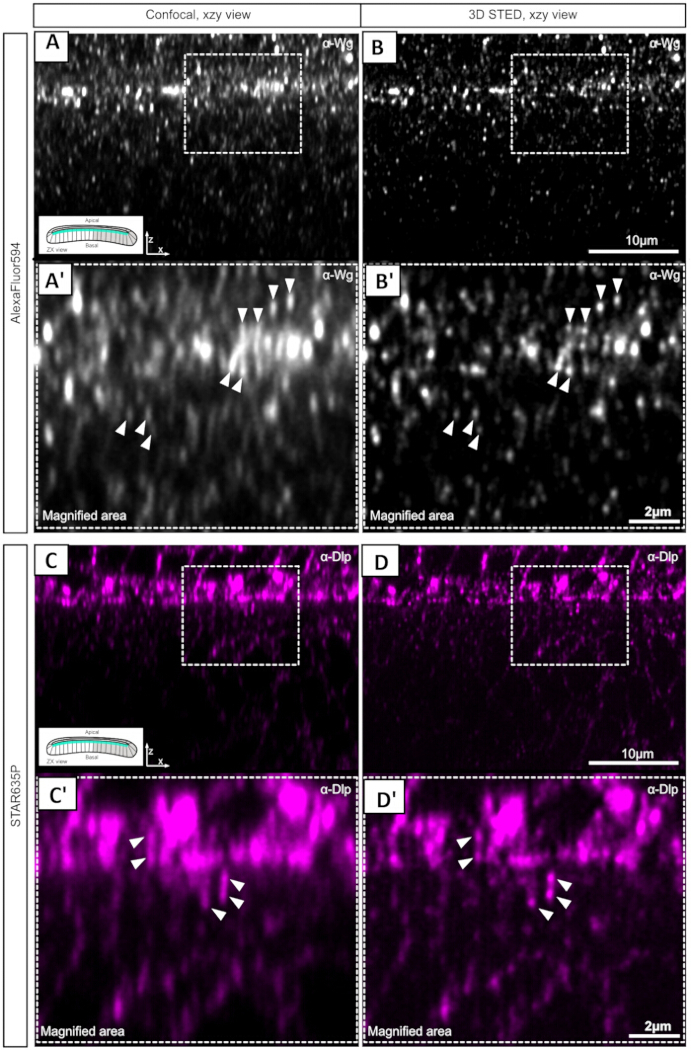
Figure 3 : Comparaison entre l'imagerie confocale et l'imagerie STED 3D au niveau de la limite DV des disques d'aile de Drosophila. (A) Image confocale de cellules sécrétant Wg au niveau de la limite DV, visualisée dans le plan XZ. La détection de Wg a été réalisée à l'aide d'un anticorps secondaire marqué par le fluorophore Alexa Fluor 594. (A’) Vue agrandie de la région indiquée, montrant des signaux allongés (flèches) dans la région de la membrane apicale. (B,B’) La même région acquise par nanoscopie STED 3D. Le signal d’Alexa Fluor 594 est représenté. Par rapport à l’imagerie confocale, la STED 3D résout les signaux allongés en points distincts et révèle plusieurs signaux individuels (flèches). (C) Image confocale du canal STAR635P du même échantillon montré dans A et B. À titre d'exemple, Dlp a été détecté à l'aide d'un anticorps secondaire conjugué au STAR635P, mettant en évidence la membrane apicale. (C’) Vue agrandie montrant des signaux allongés dans l'image confocale. (D) Image STED 3D de la même région présentée dans C. (D’) Vue agrandie démontrant que les signaux larges et allongés observés en microscopie confocale sont résolus en points distincts par l'imagerie STED 3D. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
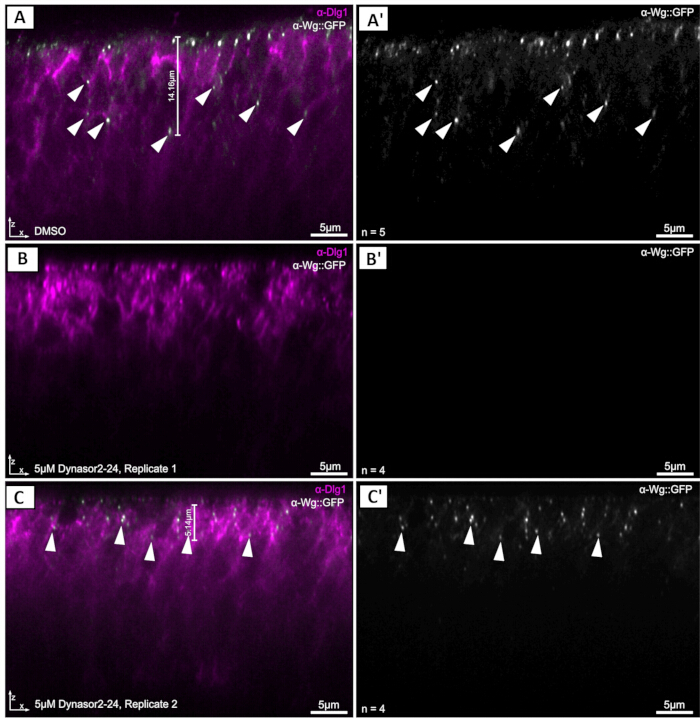
Figure 4: Combinaison de l'inhibition chimique avec le test de captation de Wg Drosophile disques imaginaux des ailes visualisés par STED en 3D. (A,A’Disque témoin représentatif traité au DMSO (n = 5). La protéine Wg::GFP extracellulaire (en gris) est efficacement marquée, et la Wg::GFP internalisée est détectée intracellulairement (flèches). Dlg1 (en magenta) marque la morphologie tissulaire et la région apicale du disque propre. (B,B’) Échantillon représentatif du réplicat 1 traité avec 5 µM Dynasore2-24 pour inhiber l'endocytose dépendante de la clathrine et de la dynamine (n = 4). Le signal Wg::GFP est aboli après le test d'absorption. (C,C’) Échantillon représentatif du réplicat 2 traité avec 5 µM Dynasore2-24 (n = 4). Le signal résiduel de Wg::GFP reste détectable près de la surface apicale (flèches), mais le signal intracellulaire est limité aux premiers environnementalement 5 µm du tissu, par rapport à environ 14 µm dans les témoins traités au DMSO (barres de mesure dans A et C). Dlg1 (magenta) sert de référence morphologique. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Paramètres | canaux Alexa Fluor 594 | Canal STAR635P |
| Objectif | 86x/1,2 HC PL APO CS2 (eau) | 86x/1,2 HC PL APO CS2 (eau) |
| Taille du pixel | 37 nm × 37 nm | 37 nm × 37 nm |
| Zoom | 1.2 | 1.2 |
| Fenêtre de détection | 3072 × 1536 pixels | 3072 × 1536 pixel |
| Moyenne linéaire | 1 | 1 |
| Accumulation linéaire | 16 | 16 |
| Vitesse de balayage | 100–200 | 100–200 |
| Taille du diaphragme à trou | 70 μm | 70 μm |
| Longueur d'onde du laser d'excitation | 580 nm | 638 nm |
| Intensité de la ligne laser d'excitation | 4 % à 10 % (selon l'échantillon) | 8 % à 10 % (selon l'échantillon) |
| Détecteur | HyD X2, 595–625 nm | HyD X4, 650–740 nm |
| Laser d'excitation avec synchronisation de la protéine Tau | 0,5–8 ns | 0,5–8 ns |
| Ligne laser d'appauvrissement | 775 nm | 775 nm |
| Puissance du laser d'épuisement | 65-75 % (selon l'échantillon) | 65-75 % (selon l'échantillon) |
| Post-traitement d'images basé sur la durée de vieτ-STED | τ-Force : 10 | τ-Force : 10 |
| τ- Suppression du fond : active | τ- Suppression du bruit de fond : active | |
| Lissage : 0 | Lissage : 0 |
Tableau 1 : Paramètres détaillés du microscope pour les fluorophores sur un microscope STELLARIS SP8. Nous avons fourni les paramètres utilisés pour les fluorophores Alexa Fluor 594 et Star635P.
Discussion
La visualisation du trafic membranaire et des dynamiques de signalisation au sein de tissus intacts reste techniquement difficile, en particulier dans les cellules épithéliales fortement polarisées telles que celles présentes dans le disque imaginal de l'aile de Drosophila. La morphologie étroite et prismatique de ces cellules limite les informations pouvant être obtenues par microscopie confocale conventionnelle, notamment lors de l'analyse de la localisation des protéines le long de l'axe apico-basal. Dans ce protocole, nous avons surmonté ces limitations en combinant la nanoscopie 3D STED11,12 avec des tests d'internalisation basés sur des anticorps et des perturbations pharmacologiques. Ensemble, ces approches permettent de visualiser des événements dynamiques de trafic protéique dans leur environnement tissulaire naturel avec une résolution spatiale inaccessibles par imagerie confocale standard.
Un avantage majeur du protocole réside dans l'utilisation de la nanoscopie STED en 3D pour étudier les processus associés aux membranes dans des tissus entiers. La comparaison directe entre l'imagerie confocale et l'imagerie STED a montré que les signaux allongés observés par microscopie confocale pouvaient être résolus en points distincts grâce à l'imagerie STED en 3D (Figure 3), améliorant considérablement la visualisation des protéines au niveau de la membrane apicale. Cette résolution accrue est particulièrement précieuse pour analyser la sécrétion, l'endocytose et les voies de trafic intracellulaire, où la localisation précise des vésicules individuelles et des complexes protéiques associés aux membranes est essentielle. En outre, la possibilité d'acquérir des vues orthogonales permet d'examiner l'organisation et le trafic des protéines le long de l'axe apico-basal des cellules épithéliales.
L'intégration de perturbations pharmacologiques à l'essai d'absorption élargit davantage les possibilités expérimentales de la méthode. Alors que l'essai d'absorption marque de façon sélective les protéines ayant subi une sécrétion suivie d'une ré-internalisation au cours d'une fenêtre temporelle définie, les traitements pharmacologiques permettent de perturber des voies de trafic spécifiques. La combinaison de ces approches fournit donc un aperçu direct de la manière dont les processus cellulaires influencent la dynamique du trafic des protéines in vivo. Comme cela a été démontré, la visualisation de Wg::GFP absorbé sous inhibition de l'endocytose dépendante de la clathrine a entraîné une perte du signal internalisé de la protéine marquée au niveau de la membrane apicale et/ou une réduction du signal d'absorption intracellulaire, illustrant ainsi comment ce protocole peut être utilisé pour étudier les mécanismes de trafic dans leur contexte tissulaire physiologique. De façon plus générale, cette approche complète les stratégies génétiques classiques et renforce davantage l'utilité de Drosophila comme système modèle pour des études mécanistiques des voies de signalisation.
Plusieurs facteurs sont essentiels pour la mise en œuvre réussie du protocole. Premièrement, le choix des anticorps primaires est crucial, car un marquage robuste et spécifique est nécessaire pour une détection fiable du signal. Toutefois, la disponibilité limitée d'anticorps validés dirigés contre des protéines endogènes de Drosophila constitue une contrainte majeure. Dans ce protocole, cela a rendu nécessaire l'utilisation d'une lignée Wg::GFP marquée de façon endogène, car de nombreux anticorps couramment utilisés contre Drosophila sont produits chez la souris, ce qui limite le marquage immunologique multiplex. Bien que les colorants fluorescents puissent offrir une alternative pour marquer des structures cellulaires telles que les membranes, les mitochondries ou d'autres organites, la plupart des colorants disponibles commercialement ont été optimisés pour des cellules en culture et sont difficiles à appliquer efficacement aux tissus entiers de Drosophila.
En outre, les anticorps secondaires et les fluorophores doivent être soigneusement évalués quant à leur compatibilité avec la nanoscopie STED, car tous les fluorophores ne fournissent pas une intensité de signal suffisante, une photostabilité ou une efficacité de déplétion adéquates dans les conditions d'imagerie STED19,26. Les résultats présentés ici soulignent davantage l'importance de la préparation des échantillons et de la manipulation des tissus. De même, les traitements pharmacologiques doivent être optimisés avec soin, car des concentrations excessives de médicaments peuvent compromettre l'intégrité du tissu et générer des artefacts d'imagerie qui masquent les signaux biologiques. L'orientation précise du tissu est tout aussi importante, puisque l'alignement exact de la limite dorsoventrale est nécessaire pour obtenir des vues orthogonales et imaginer de façon reproductible les populations cellulaires souhaitées (Figure 2).
Plusieurs modifications peuvent être introduites afin d'adapter le protocole à différentes exigences expérimentales : la durée du test d'absorption peut être ajustée pour équilibrer un marquage protéique suffisant avec la préservation de l'intégrité tissulaire. De même, les concentrations d'inhibiteurs peuvent nécessiter une titration selon le type de tissu, le stade de développement ou la voie de signalisation étudiée. Le protocole est également compatible avec diverses approches de coloration, notamment l'immunofluorescence standard, l'immunofluorescence extracellulaire et les stratégies de marquage basées sur des fluorophores, à condition que les fluorophores choisis soient adaptés à la nanoscopie STED. Bien que le protocole actuel se concentre sur l'imagerie en deux couleurs, l'ajout de fluorophores supplémentaires et de configurations d'imagerie pourrait encore élargir son champ d'application.
Bien que ce protocole ait été développé en utilisant les disques imaginaux des ailes de Drosophila et la voie de signalisation Wg/Wnt comme système modèle, cette approche ne se limite pas à ces applications. Le flux de travail peut facilement être adapté à d'autres tissus de Drosophila et est susceptible d'être transféré à d'autres modèles d'insectes présentant des dimensions tissulaires et des propriétés optiques comparables. De manière plus générale, la combinaison de tests d'absorption, de perturbations pharmacologiques et de nanoscopie STED en 3D offre un cadre polyvalent pour étudier l'organisation membranaire, le trafic des protéines, la sécrétion et la dynamique de la signalisation in vivo. Cette capacité devrait s'avérer utile non seulement pour les études fondamentales des voies de signalisation du développement, mais aussi pour la recherche biomédicale visant à comprendre les défauts de trafic associés aux maladies. En permettant la visualisation directe de populations protéiques dynamiques à une résolution subcellulaire au sein de tissus intacts, cette méthode fournit une plateforme puissante pour l'étude des mécanismes cellulaires régulant la signalisation dans des systèmes biologiques complexes.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun intérêt concurrent.
Remerciements
M.B. et M.H. sont soutenus par le Centre de recherche collaborative CRC/SFB1324 de la Deutsche Forschungsgemeinschaft (numéro de projet 331351713) sur les mécanismes et fonctions de la signalisation Wnt. Nous tenons à remercier la plateforme de microscopie photonique du DKFZ (LMCF) pour son expertise et son soutien.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Tubes à réaction PCR de 0,2 mL | Biozym | 711068 | |
| Tubes à réaction de 1,5 mL | Sarstedt | 72.706.700 | |
| Couvre-objets en verre 1.5H au fond du μ-Dish, 35 mm | Ibidi | #81158 | |
| Couvre-objets ronds (12 mm) en verre 1.5H | Marienfeld | aucun | |
| Plaque de coloration en verre à 12 puits | Marienfeld | CET6.20 | |
| Formaldéhyde à 37 % | Merck | F8775 | |
| anticorps anti-dlg1 | DSHB | 4F3 | |
| anticorps anti-dlp | DSHB | 13G8 | |
| anticorps anti-GFP | Invitrogen | A11122 | |
| anticorps anti-souris Alexa Fluor 594 | Invitrogen | A21201 | |
| anticorps anti-souris STAR635P | Abberior | ST635P-1001 | |
| anticorps anti-lapin Alexa Fluor 594 | Invitrogen | A11012 | |
| anticorps anti-lapin STAR635P | Abberior | ST635P-1002 | |
| anticorps anti-Wg | DSHB | 4D4 | |
| Blu Tack | Bostik | 30811745 | Adhésif sensible à la pression |
| DMSO | VWR | SIAL472301 | |
| Pinces Dumont 5 | Dumaont | No. 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| Sérum de veau foetal (FBS) | Sigma-Aldrich | F7524 | |
| Glycine | Gerbu | 10.231.000 | |
| Microscope Leica Stellaris 8 STED Falcon | Leica Microsystems | N/A | |
| Vernis à ongles | essence | N/A | |
| Sérum de chèvre normal | Cell Signalling | 5425S | |
| Objectif : objectif HC PL APO 86x/1,20 W motCORR STED blanc | Leica Microsystems | N/A | |
| Comprimés de PBS | Life technologies | 18912014 | |
| Photo Flo | Kodak | N/A | |
| Poly-L-Lysine | Sigma-Aldrich | P1524 | |
| Milieu pour insectes de Schneider | Sigma | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
Références
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.