Cette étude examine l'association entre l'apport alimentaire en vitamine B12 et la néphropathie diabétique à l'aide de données NHANES et d'analyses transcriptomiques. Un apport plus élevé en vitamine B12 était associé à des cotes plus faibles de néphropathie diabétique, et P2RY14 a été identifié comme un gène candidat générant une hypothèse.
Article de recherche
Apport en vitamine B12 et maladie rénale diabétique : une étude transversale basée sur NHANES avec identification transcriptomique de P2RY14
Dans cet article
Résumé
Résumé
La maladie rénale diabétique (DKD) est une complication majeure du diabète, et le lien entre l'apport en vitamine B12 et la DKD reste incertain. Cette étude transversale a inclus 8 218 participants du National Health and Nutrition Examination Survey (NHANES) 2011–2018. Une régression logistique multivariée a montré que les participants appartenant au quartile le plus élevé d'apport en vitamine B12 présentaient une probabilité plus faible de DKD que ceux du quartile le plus bas (rapport de cotes (OR) : 0,70 ; intervalle de confiance à 95 % (IC) : 0,50–0,97). Une analyse par splines cubiques restreintes a révélé une association non linéaire significative entre l'apport en vitamine B12 et la DKD. Une analyse transcriptomique a identifié 493 gènes différentiellement exprimés (DEG), dont 20 recoupaient des gènes liés à la cobalamine. P2RY14 était significativement surexprimé dans la DKD et présentait une capacité préliminaire de discrimination dans les jeux de données GSE30528, GSE30529 et GSE142025. Des analyses d'enrichissement fonctionnel ont suggéré des associations entre P2RY14 et l'interaction matrice extracellulaire–récepteur, l'adhésion focale et le développement rénal. Une modélisation moléculaire exploratoire a prédit un mode de liaison potentiel entre MC-1 et P2RY14, avec un score Vina de −6,0 kcal/mol. Dans l'ensemble, ces résultats appuient une association entre l'apport en vitamine B12 et la DKD et identifient P2RY14 comme un candidat générant des hypothèses, nécessitant des investigations ultérieures.
Introduction
Le diabète sucré (DM) est un trouble métabolique caractérisé par une hyperglycémie chronique, résultant d'un déficit absolu ou relatif en sécrétion d'insuline et/ou en activité de l'insuline. Il affecte environ 537 millions de personnes dans le monde1. Au cours des trois dernières décennies, la prévalence mondiale du DM a presque quadruplé, environ une personne sur onze étant diagnostiquée, dont 90 % souffrent de diabète sucré de type 2 (T2DM)2. Le T2DM entraîne fréquemment de nombreuses complications microvasculaires et macrovasculaires, notamment les maladies cardiovasculaires, les accidents vasculaires cérébraux, la néphropathie, la neuropathie et la rétinopathie3. Ces complications contribuent largement à l'augmentation des taux d'incapacité, à la détérioration de la qualité de vie et à la réduction de l'espérance de vie4,5. La néphropathie diabétique (DKD), complication microvasculaire fréquente du diabète, représente une préoccupation particulière, puisqu'elle se développe chez environ 20 % des patients atteints de DM6. La DKD se caractérise par une albuminurie persistante et un déclin progressif du débit de filtration glomérulaire (GFR). Si elle n'est pas contrôlée, la DKD peut éventuellement conduire à une insuffisance rénale terminale (ESKD), où la fonction rénale est gravement altérée, nécessitant une dialyse ou une greffe rénale pour assurer la survie7,8. De plus, les patients atteints de DKD présentent un risque accru de développer des maladies cardiovasculaires, même aux stades précoces, et cette comorbidité est associée à un risque accru de mortalité, imposant ainsi un fardeau considérable aux systèmes de santé9,10,11. Par conséquent, il est essentiel d'étudier en profondeur les facteurs contribuant à la progression de la DKD. Une compréhension plus approfondie de ces facteurs est cruciale pour élaborer des stratégies thérapeutiques efficaces permettant de prévenir à la fois l'apparition et la progression de la DKD en pratique clinique.
Les vitamines du groupe B, un ensemble de vitamines hydrosolubles, jouent un rôle essentiel dans le métabolisme cellulaire et l'homéostasie, en maintenant l'équilibre physiologique, la défense antioxydante et la synthèse des globules rouges12. La principale source de vitamine B est l'apport alimentaire. En raison de leur nature hydrosoluble, ces vitamines sont généralement difficiles à stocker dans l'organisme humain12. L'excès de vitamine B est rapidement éliminé dans les urines ; toutefois, l'absorption, l'utilisation et le métabolisme individuels peuvent varier considérablement13. Une carence en vitamine B peut gravement altérer la fonction cellulaire et le système immunitaire, entraînant une inflammation associée à l'hyperhomocystéinémie14. Des facteurs tels qu'une carence en vitamine B peuvent contribuer à la progression de la maladie rénale chronique (MRC) en influant sur les processus inflammatoires et de stress oxydatif liés à l'altération de la fonction rénale et à la pathologie du tissu rénal15. Parmi les vitamines du groupe B, la vitamine B12, également appelée cobalamine, est une vitamine hydrosoluble essentielle qui joue un rôle majeur dans le métabolisme, notamment dans la synthèse de l'ADN, la méthylation et le métabolisme mitochondrial15. Chez les patients atteints de MRC ou de maladie rénale terminale, diverses altérations métaboliques — notamment l'acidose, l'inflammation systémique et les déséquilibres hormonaux — ainsi que les comorbidités et la polymédication peuvent entraîner une malnutrition, conduisant par conséquent à une carence en vitamine B1216. De nombreuses études ont établi une corrélation entre de faibles concentrations sériques de vitamine B12 et des affections telles qu'un indice de masse corporelle (IMC) élevé, une résistance à l'insuline, un diabète de type 2 (DT2), une dyslipidémie et des maladies cardiovasculaires17. Inversement, une toxicité potentielle liée à un excès de vitamine B12 pourrait aggraver l'état des patients atteints de MRC18. De plus, une étude récente a indiqué que des concentrations plus élevées de vitamine B12 sont associées à une mortalité toutes causes confondues accrue chez les patients sous hémodialyse19. Toutefois, la relation entre l'apport en vitamine B12 et l'apparition de la néphropathie diabétique (ND) n'a pas encore été étudiée de manière exhaustive. En outre, les caractéristiques moléculaires susceptibles de relier les processus biologiques liés à la vitamine B12 à la ND restent insuffisamment caractérisées. L'intégration de données épidémiologiques issues de populations avec des données transcriptomiques pourrait donc offrir une stratégie complémentaire permettant d'identifier des caractéristiques moléculaires candidates pertinentes pour l'association observée et de hiérarchiser des cibles destinées à des investigations expérimentales ultérieures.
Étant donné le manque actuel de compréhension, nous avons mené une étude transversale utilisant des données provenant de la base de données NHANES afin d'explorer l'association entre l'apport en vitamine B12 et la DRC, en contrôlant un large éventail de facteurs de confusion potentiels. Parallèlement, des jeux de données transcriptomiques de la DRC ont été analysés pour identifier les gènes différentiellement exprimés, qui ont ensuite été croisés avec des gènes liés à la vitamine B12 afin de sélectionner des molécules candidates potentiellement impliquées dans la DRC. Cette approche intégrée pourrait fournir des éclairages supplémentaires sur l'association entre la vitamine B12 et la DRC.
Protocole
La présente étude constituait une analyse secondaire de données NHANES accessibles au public et dépersonnalisées, et n'a impliqué aucun recrutement supplémentaire de participants, aucune intervention ni aucune collecte d'informations personnellement identifiables. Par conséquent, aucun consentement éclairé supplémentaire n'était requis pour la présente analyse.
Population étudiée et sélection des participants
L'Enquête nationale sur la santé et l'alimentation (NHANES) utilise un plan d'échantillonnage probabiliste complexe et en plusieurs étapes pour recueillir des données représentatives au niveau national sur la santé et la nutrition auprès de la population américaine.
Les données de 39 156 participants provenant de quatre cycles de l'NHANES (2011–2012, 2013–2014, 2015–2016 et 2017–2018) ont initialement été prises en compte. Les participants ont été exclus s'ils remplissaient l'un des critères suivants : (1) âge < 18 ans ; (2) données manquantes sur l'apport alimentaire en vitamine B12 ; (3) informations incomplètes nécessaires à l'évaluation du diabète, notamment les antécédents de diabète autodéclarés, l'hémoglobine glyquée (HbA1c) ou la glycémie plasmatique à jeun (FPG) ; ou (4) informations incomplètes nécessaires à l'évaluation de la maladie rénale, notamment le rapport albumine/créatinine urinaire (ACR) ou le débit de filtration glomérulaire estimé (eGFR) (Figure 1). Après ces exclusions, 8 218 participants disposant de toutes les données nécessaires à l'analyse actuelle ont été inclus.
Définition du DT, de l'IRC et du DTD
Selon les critères établis par l'Association américaine du diabète et des études antérieures, le diabète sucré (DM) a été diagnostiqué sur la base des éléments suivants : (1) un diagnostic médical préalable, (2) des taux de glycémie à jeun (FPG) ≥ 7,0 mmol/L, (3) des taux d'HbA1c ≥ 6,5 %, ou (4) l'utilisation déclarée d'insuline ou de médicaments antidiabétiques. Une néphropathie chronique (CKD) a été identifiée20,21 chez les participants présentant un rapport albumine/créatinine (ACR) ≥ 30 mg/g ou un débit de filtration glomérulaire estimé (eGFR) (eGFR = 175 × (créatinine sérique en mg/dL)-1.154 × (âge en années)-0.203 × (0,742 si femme) × (1,21 si personne noire)) < 60 mL/min/1,73 m2. La néphropathie diabétique (DKD) a été définie par la présence simultanée de DM et de CKD20. Les participants remplissant à la fois les critères de DM et de CKD ont été classés dans le groupe DKD, tandis que ceux n'ayant pas simultanément les deux critères ont été classés dans le groupe Non-DKD. Le groupe Non-DKD comprenait donc les participants ayant un DM mais sans CKD, ceux ayant une CKD mais sans DM, ainsi que ceux n'ayant ni DM ni CKD.
Covariables
Cette étude a pris en compte des variables de confusion pouvant influencer l'association entre la vitamine B12 et la DKD. Les variables démographiques comprenaient l'âge, le sexe, la race/ethnicité, le niveau d'éducation, le ratio revenu/pauvreté (PIR), l'état matrimonial, la consommation d'alcool, le comportement tabagique, l'IMC, l'activité physique (AP), ainsi que la présence d'hypertension et d'hyperlipidémie. Les participants âgés de 18 ans et plus ont été inclus dans cette analyse et répartis en deux groupes d'âge : les adultes jeunes à d'âge moyen (18–< 60 ans) et les adultes âgés (≥ 60 ans). Le sexe était catégorisé comme masculin ou féminin. Les classifications ethniques comprenaient les Américains mexicains, les Hispaniques d'autres origines, les Blancs non hispaniques, les Noirs non hispaniques, et les personnes d'autres origines ou multiraciales. Le niveau d'éducation était divisé en trois niveaux : moins que le diplôme d'études secondaires, diplômé du secondaire, et études universitaires ou supérieures. Le PIR était classé en trois catégories : < 1,5, 1,5–3,49 et ≥ 3,521. L'état matrimonial était indiqué comme marié/vivant avec un partenaire, jamais marié, ou veuf/divorcé. Le statut tabagique était classé en trois groupes : fumeurs actuels (fumeurs quotidiens et occasionnels), anciens fumeurs (ayant fumé > 100 cigarettes au cours de leur vie mais ne fumant plus) et non-fumeurs (ayant fumé < 100 cigarettes au cours de leur vie). Le statut d'alcoolisation était classé en trois catégories : consommation excessive (femmes : > 3 verres par jour ; hommes : > 4 verres par jour), consommation modérée (femmes : 2 verres par jour ; hommes : 3 verres par jour), consommation légère (femmes : < 2 verres par jour ; hommes : < 3 verres par jour)22. L'IMC était classé comme suit : < 25 kg/m2, 25–29,9 kg/m2 et ≥ 30 kg/m2. Les niveaux d'AP étaient catégorisés comme faibles (< 600 MET-min/semaine), modérés (600 à < 3000 MET-min/semaine) et élevés (≥ 3000 MET-min/semaine). L'hyperlipidémie était confirmée selon les critères suivants (présence d'au moins un des critères suivants) : (1) taux de cholestérol total (CT) ≥ 200 mg/dL ; (2) taux de triglycérides totaux (TG) ≥ 150 mg/dL ; (3) hommes : taux de lipoprotéines de haute densité (HDL) < 40 mg/dL ; femmes : taux d'HDL < 50 mg/dL ; (4) taux de lipoprotéines de basse densité (LDL) ≥ 130 mg/dL ; ou (5) utilisation d'un traitement antihyperlipidémiant.
De plus, des indicateurs biochimiques et des apports alimentaires ont également été pris en compte, notamment le rapport albumine-créatinine urinaire (ACR), l'acide urique sérique (μmol/L), le DFG (mL/min/1,73m2), la créatinine sérique (Scr), l'azote uréique sanguin (AUS), le cholestérol total sérique (CT), les triglycérides (TG), l'alanine aminotransférase sérique (ALAT), l'aspartate aminotransférase sérique (ASAT), ainsi que les apports alimentaires tels que l'apport énergétique (kcal), les protéines (g), les glucides (g), les lipides totaux (g), le sodium (mg), le potassium (mg), etc.
Variable indépendante
L'apport alimentaire en vitamine B12 a été utilisé comme variable d'exposition principale. Les données sur l'apport en nutriments ont été obtenues à partir des fichiers Total Nutrient Intake du NHANES, qui résument l'apport quotidien en nutriments provenant des aliments et des boissons. L'apport en vitamine B12 provenant des suppléments alimentaires n'a pas été inclus. Seuls les participants disposant de données valides de rappel alimentaire pour les deux jours ont été inclus, et la moyenne de l'apport en vitamine B12 sur les deux jours de rappel a été calculée et exprimée en μg/jour. L'apport alimentaire résultant en vitamine B12 a été réparti en quartiles (Q1–Q4) pour les analyses multivariées principales.
Sources de données et collection de jeux de gènes
Les jeux de données d'expression de DKD, GSE30528 et GSE30529, ont été obtenus à partir de la base de données Gene Expression Omnibus (GEO). Les deux jeux de données ont été générés sur la plateforme GPL571. GSE30528 comprenait 9 échantillons glomérulaires de DKD et 13 échantillons glomérulaires témoins normaux, tandis que GSE30529 comprenait 10 échantillons tubulaires de DKD et 12 échantillons tubulaires témoins normaux. Pour les deux jeux de données de puces à ADN, les données d'expression normalisées par RMA et transformées en log2 ont été obtenues directement à partir de GEO. Les identifiants des sondes ont été associés aux symboles des gènes selon le fichier d'annotation de la plateforme GPL571. Lorsque plusieurs sondes correspondaient au même gène, leur valeur moyenne d'expression a été utilisée pour représenter l'expression au niveau du gène.
Le jeu de données GSE142025, un ensemble de données d'ARN-séquençage, a été en outre inclus pour la validation des gènes candidats. Les données d'expression en TPM ont été obtenues à partir de GEO et transformées en log2 avant l'analyse ultérieure. L'annotation des gènes a été réalisée à l'aide de l'annotation du génome de référence hg19. Étant donné que chaque jeu de données a été analysé indépendamment et que les matrices d'expression provenant de différents jeux de données n'ont pas été directement combinées, aucune correction des effets de lot entre jeux de données n'a été appliquée.
Un total de 716 gènes liés à la cobalamine (vitamine B12) ont été récupérés à partir de la base de données GeneCards le 13 mars 2026, à l’aide du mot-clé « COBALAMINE ». Aucun seuil de score de pertinence ni critère de filtration supplémentaire n’a été appliqué, et les 716 gènes récupérés ont tous été conservés comme ensemble de gènes liés à la vitamine B12.
Expression différentielle et analyse d'enrichissement fonctionnel
Une analyse d'expression différentielle entre les échantillons de DNK et les échantillons normaux a été réalisée à l'aide du package R « limma » (version 3.56.2)23, les gènes différentiellement exprimés (GDE) étant identifiés selon les critères |log2FC| > 1 et un taux de fausses découvertes (FDR) < 0,05. Afin d'identifier les gènes candidats liés au métabolisme de la vitamine B12, le package R ggvenn (version 0.1.19) a été utilisé pour effectuer une analyse d'intersection entre les GDE identifiés et l'ensemble de gènes liés à la vitamine B12 obtenu à partir de la base de données GeneCards. Les gènes communs ont été visualisés à l'aide d'un diagramme de Venn et conservés comme gènes candidats pour les analyses ultérieures. Une analyse d'enrichissement fonctionnel des GDE a ensuite été réalisée à l'aide du package R « clusterProfiler » (version 4.8.3)24, couvrant les termes de l'Ontologie Génétique (GO) (processus biologique, fonction moléculaire et composant cellulaire) ainsi que les voies de la Kyoto Encyclopedia of Genes and Genomes (KEGG). Les termes d'enrichissement présentant une valeur p- ajustée < 0,05 ont été considérés comme statistiquement significatifs.
Analyse d'enrichissement de gènes (GSEA)
Dans le jeu de données GSE30528, les échantillons ont été divisés en groupes P2RY14-fort et P2RY14-faible selon le niveau médian d'expression de P2RY14. Une analyse d'expression différentielle a ensuite été réalisée entre les deux groupes, et tous les gènes ont été classés par ordre décroissant selon les valeurs de logFC obtenues. L'analyse d'enrichissement par groupe de gènes (GSEA) a ensuite été effectuée à l'aide du package R clusterProfiler (version 4.8.3)24. Les jeux de gènes GO et KEGG ont été obtenus à l'aide du package msigdbr à partir de la base de données MSigDB (version v2025.1.Hs). Les jeux de gènes enrichis avec une valeur de p ajustée < 0,05 ont été considérés comme statistiquement significatifs.
Réseaux d'interactions protéine-protéine (IPP)
Les associations fonctionnelles des protéines et les réseaux d'interactions protéine-protéine (PPI) ont été analysés à l'aide de la base de données STRING (version 11.0) (https://string-db.org/)25, avec Homo sapiens sélectionné comme organisme et un score de confiance minimal pour les interactions de 0,4. Le réseau d'interactions protéiques (PPI) obtenu a été visualisé à l'aide de Cytoscape26De plus, les mêmes 20 gènes candidats en chevauchement ont été soumis à la plateforme en ligne GeneMANIA afin de caractériser davantage leurs associations fonctionnelles. GeneMANIA intègre plusieurs types de données, notamment la co-expression génique, les interactions physiques, les interactions génétiques, les domaines protéiques partagés et les informations sur les voies métaboliques, avec Homo sapiens sélectionné comme organisme et les paramètres restants définis par défaut.
Criblage médicament–cible
Pour identifier les composés potentiellement associés à P2RY14, des informations sur les interactions médicament-cible ont été extraites de la base de données GeneCards, permettant d'obtenir cinq composés candidats. Ces candidats ont ensuite été croisés avec la base de données DGIdb. Le composé MC-1 (ID DrugBank : DB05315 ; CID PubChem : 1051) a été identifié dans les deux bases de données et a donc été sélectionné pour une analyse exploratoire ultérieure de docking moléculaire.
Analyse de docking moléculaire
Afin d'explorer le mode de liaison potentiel entre le composé MC-1 et P2RY14, un dockage moléculaire a été réalisé à l'aide de la plateforme en ligne CB-Dock2, qui intègre la détection de cavités avec le moteur de dockage AutoDock Vina. La structure tridimensionnelle du MC-1 (CID PubChem : 1051) a été obtenue à partir de PubChem, et le modèle tridimensionnel prédit de P2RY14 a été récupéré dans la base de données de structures protéiques AlphaFold (AF-Q15391-F1-model_v4). Le score pLDDT moyen du modèle P2RY14 était de 87,12, tandis que le score pLDDT local de la région prédite du site de liaison était > 90, indiquant une forte confiance dans la structure locale prédite. Une stratégie de dockage aveugle guidée par cavité a été utilisée. Des cavités de liaison candidates ont été recherchées sur l'ensemble de la structure de P2RY14, et les cinq cavités présentant les volumes prédits les plus élevés ont été évaluées. Des atomes d'hydrogène ont été ajoutés lors de la préparation du récepteur et du ligand afin d'approcher les états de protonation dans des conditions physiologiques (environ pH 7,4). Le récepteur a été considéré comme rigide, tandis que le ligand a été traité comme flexible, avec des liaisons rotatives autorisées. Huit simulations de dockage indépendantes ont été effectuées. La conformation présentant le score Vina le plus bas a été sélectionnée comme mode de liaison prédit représentatif. Le complexe récepteur–ligand obtenu a été visualisé et analysé à l'aide du logiciel Discovery Studio (version 4.5).
Analyse statistique
Étant donné le plan d'échantillonnage probabiliste complexe, multistage et stratifié de la NHANES, toutes les analyses fondées sur la NHANES ont intégré les poids d'enquête appropriés, les strates et les unités primaires d'échantillonnage (PSU). Puisque l'apport en vitamine B12 était calculé à partir de deux jours de rappel alimentaire, le poids d'échantillon alimentaire sur deux jours (WTDR2D) a été utilisé. Pour les quatre cycles combinés de la NHANES (2011–2018), le poids d'échantillon alimentaire sur huit ans a été calculé comme WTDR2D/4, avec intégration de SDMVSTRA et SDMVPSU afin de tenir compte de la stratification et du regroupement. Les variables continues ont été exprimées en moyenne ± écart-type (ET), et les variables catégorielles en effectifs et pourcentages. Les différences entre groupes ont été évaluées à l'aide de tests t pondérés et de tests du chi-deux pondérés. Une régression logistique multivariée a été utilisée pour évaluer l'association entre l'apport en vitamine B12 et la DKD. Le modèle 1 était non ajusté ; le modèle 2 était ajusté sur l'âge, le sexe, la race/ethnicité, l'état matrimonial et le niveau d'éducation ; et le modèle 3 était ajusté sur tous les covariables, y compris l'apport énergétique total et d'autres covariables alimentaires. Toutes les analyses de régression ont intégré WTDR2D/4, SDMVSTRA et SDMVPSU. Les quartiles d'apport en vitamine B12 (Q1–Q4) ont été utilisés comme exposition principale, l'apport continu en vitamine B12 étant analysé en complément. Des analyses en sous-groupes ont été réalisées selon l'âge, le sexe, l'IMC, le DFG, le TAR, l'hypertension et l'hyperlipidémie. Une analyse par spline cubique restreinte (RCS) a été effectuée à l'aide du modèle 3 entièrement ajusté pour évaluer une éventuelle non-linéarité. Quatre nœuds ont été placés aux 5e, 35e, 65e et 95e percentiles de l'apport en vitamine B12, avec une valeur de référence de 3,24 μg/jour utilisée pour la présentation graphique. Cette valeur de référence a été dérivée d'une analyse exploratoire ultérieure du point de rupture et n'a pas été interprétée comme un niveau d'apport recommandé sur le plan clinique. Les analyses RCS ont également intégré WTDR2D/4, SDMVSTRA et SDMVPSU, et la non-linéarité a été évaluée à l'aide d'un test de Wald. En cas de détection d'une non-linéarité significative, des points de rupture potentiels ont été identifiés à l'aide d'une procédure de recherche récursive combinée au critère d'information d'Akaike (AIC) minimal, suivie d'une analyse de régression segmentée en trois parties. Des analyses de sensibilité ont été réalisées en utilisant des spécifications RCS alternatives avec trois et cinq nœuds27. Une analyse de courbe ROC a été effectuée pour évaluer préliminairement la capacité discriminante de P2RY14, avec des intervalles de confiance à 95 % rapportés pour les AUC. Une valeur de p < 0,05 a été considérée comme statistiquement significative. Toutes les analyses statistiques ont été réalisées à l'aide du logiciel R (version 4.4.1).
Résultats
Caractéristiques de base
Un total de 8 218 participants des NHANES 2011–2018 ont été inclus, parmi lesquels 623 ont été classés comme ayant une DRC et 7 595 comme n’ayant pas de DRC. Des différences significatives entre les groupes DRC et sans DRC ont été observées en fonction de l’âge, du sexe, de la race/ethnicité, de l’état matrimonial, du niveau d’éducation, du RPI, de l’IMC, de la pression artérielle, de l’hypertension, de la consommation d’alcool, du statut tabagique, de l’apport en vitamine B12 et de l’apport alimentaire (tous les p < 0,05). Des différences significatives ont également été observées pour l’ACR, le TFG, la Scr, l’UNB, le CT et les TG (Tableau 1).
Des différences significatives selon les quartiles d'apport en vitamine B12 ont été observées pour le niveau d'éducation, l'hypertension artérielle, le statut de DNQ et l'apport énergétique. En revanche, aucune différence significative n'a été observée selon les quartiles pour l'âge, l'état matrimonial, l'IMC, la pression artérielle, la consommation d'alcool, le DFG, le RAC, l'acide urique sérique, la créatinine sérique ou les triglycérides (Tableau 2).
Association entre la vitamine B12 et les DTS
L'apport en vitamine B12 a été réparti en quartiles (Q1–Q4), et les résultats des analyses de régression logistique multivariée sont présentés dans le Tableau 3. Dans le modèle 3 entièrement ajusté, les participants du quartile le plus élevé d'apport en vitamine B12 (Q4) présentaient des probabilités significativement plus faibles de développer une DKD que ceux du quartile le plus bas (Q1) (OR = 0,70, IC à 95 % : 0,50–0,97, p = 0,034), tandis qu'aucune association significative n'a été observée pour Q2 (OR = 1,14, IC à 95 % : 0,85–1,53, p = 0,386) ni pour Q3 (OR = 0,94, IC à 95 % : 0,69–1,28, p = 0,684). De plus, la tendance linéaire dans le modèle entièrement ajusté n'a pas atteint la signification statistique (p pour la tendance = 0,086), bien que la direction générale de l'association soit inverse. Ces résultats suggèrent qu'un apport plus élevé en vitamine B12, particulièrement dans le quartile le plus élevé, était associé à des probabilités plus faibles de DKD, mais les résultats ne soutiennent pas une relation dose-réponse linéaire stable entre l'apport en vitamine B12 et la DKD.
Analyses de sous-groupes de l'association entre la vitamine B12 et la DNK
Des analyses de sous-groupes ont été réalisées afin d'examiner si l'association entre l'apport en vitamine B12 et la DRC était cohérente selon différentes caractéristiques des participants. Dans le modèle 1, les participants du quartile d'apport le plus élevé en vitamine B12 (Q4) présentaient des chances significativement plus faibles de DRC que ceux du Q1, tant dans le sous-groupe des hommes que dans celui des femmes (p < 0,05 ; Tableau 4). Les associations selon les sous-groupes de TRA étaient plus hétérogènes. Chez les participants présentant un TRA < 30 mg/g, des associations significatives ont été observées pour certains quartiles intermédiaires d'apport en vitamine B12, tandis que ce profil s'atténuait après stratification par des niveaux plus élevés de TRA. Aucune association significative n'a été observée selon les sous-groupes de DFG.
Relation non linéaire entre la vitamine B12 et la DNPA
L'analyse RCS entièrement ajustée a révélé une association non linéaire significative entre l'apport en vitamine B12 et la DKD (Figure 2, p pour la non-linéarité = 0,037). Le modèle RCS utilisait quatre nœuds situés aux 5e, 35e, 65e et 95e percentiles de la distribution de l'apport en vitamine B12, avec une valeur de référence de 3,24 μg/jour. Une analyse ultérieure par seuils a identifié deux seuils déterminés par les données à 3,24 μg/jour (IC à 95 % : 2,86–3,62) et 8,36 μg/jour (IC à 95 % : 7,52–9,20), divisant ainsi l'apport en vitamine B12 en trois intervalles. Pour un apport en vitamine B12 < 3,24 μg/jour, aucune association significative avec la DKD n'a été observée (OR = 1,07, p = 0,575). Dans la plage de 3,24 à 8,36 μg/jour, l'apport en vitamine B12 était inversement associé à la DKD (OR = 0,87, p = 0,025). Pour un apport > 8,36 μg/jour, aucune association significative n'a été observée (OR = 1,00, p = 0,995) (Tableau 5). Ces résultats étaient compatibles avec un modèle non linéaire, une association inverse significative n'étant observée que dans la plage intermédiaire d'apport. Afin d'évaluer la robustesse de ces résultats, des analyses de sensibilité ont été réalisées en utilisant des spécifications RCS alternatives avec trois et cinq nœuds. Des profils d'association globaux similaires ont été observés, avec des associations globales statistiquement significatives dans les modèles 1 à 3 selon les deux spécifications de nœuds, tandis que les modèles à cinq nœuds appuyaient davantage une relation non linéaire (Figure supplémentaire 1).
Identification de gènes candidats liés à la vitamine B12 dans la DKD
Dans le jeu de données GSE30528, nous avons identifié 493 gènes différentiellement exprimés (GDE) entre les échantillons de DNK et les échantillons normaux, comprenant 126 gènes surexprimés et 367 gènes sous-exprimés (|log₂FC| > 1, FDR < 0,05 ; Figure 3A,B, Tableau supplémentaire 1). Une analyse des voies KEGG a révélé un enrichissement significatif de ces GDE dans les voies d'interaction entre le récepteur et la matrice extracellulaire (MEC), l'adhésion focale, la signalisation des intégrines et la régulation du cytosquelette d'actine (Figure 3C, Tableau supplémentaire 2). Une analyse d'enrichissement GO a en outre indiqué que les GDE étaient principalement associés à la matrice extracellulaire contenant du collagène, au développement du glomérule, à l'adhésion focale et au développement du néphron (Figure 3D, Tableau supplémentaire 2).
L'analyse d'intersection des gènes différentiellement exprimés (GDE) et de l'ensemble de gènes liés à la vitamine B12 a identifié 20 gènes candidats communs (Figure 3E). Ces gènes ont ensuite été utilisés pour construire un réseau d'interactions protéiques (PPI) à l'aide de la base de données STRING, les interactions étant filtrées selon un score de confiance minimal de 0,4. Le réseau obtenu comprenait 11 nœuds et 20 arêtes, représentant respectivement les protéines et leurs interactions (Figure 3F). Les relations entre les 20 gènes candidats ont été visualisées plus en détail à l'aide de GeneMANIA (Figure 3G).
Caractérisation exploratoire de P2RY14 comme gène candidat associé à la vitamine B12 dans la DNK
Sur la base de l'association observée entre l'apport en vitamine B12 et l'état de la DNK, nous avons ensuite cherché à identifier les gènes clés liés à la vitamine B12 impliqués dans la pathogenèse de la DNK à l'aide d'une analyse transcriptomique. Parmi les 20 gènes candidats communs, nous avons comparé plus en détail leurs profils d'expression dans différents jeux de données sur la DNK. Dans les jeux de données GSE30528 et GSE30529, l'expression de P2RY14 était significativement augmentée dans les échantillons de DNK par rapport aux témoins normaux (Figure 4A,B). Le gène P2RY14 code pour un récepteur couplé à une protéine G et a été signalé comme impliqué dans la chimiotaxie des cellules immunitaires, le réarrangement du cytosquelette, les réponses inflammatoires et le stress oxydatif28,29. Toutefois, son rôle dans la DNK n'a pas encore été directement étudié. Compte tenu de sa surexpression constante dans plusieurs jeux de données indépendants sur la DNK et de sa pertinence biologique potentielle, P2RY14 a été sélectionné pour des analyses fonctionnelles et une validation ultérieure. Une analyse de courbe ROC a ensuite été réalisée afin d'évaluer préliminairement la capacité discriminante de P2RY14. Dans le jeu de données de découverte GSE30528, la valeur d'AUC était de 0,923 (IC 95 % : 0,807–1,000), tandis que dans le jeu de données de validation externe préliminaire GSE30529, l'AUC était de 0,883 (IC 95 % : 0,744–1,000). Dans le jeu de données supplémentaire de validation GSE142025, l'AUC était de 0,663 (IC 95 % : 0,478–0,847), indiquant une capacité discriminante limitée (Figure 4C–E). Dans leur ensemble, ces résultats fournissent des éléments préliminaires en faveur d'une valeur discriminante potentielle de P2RY14, bien que sa performance diagnostique doive être confirmée dans de plus grandes cohortes indépendantes.
Pour explorer les fonctions biologiques et les voies associées à P2RY14 expression dans DKD, les échantillons de GSE30528 ont été divisés en P2RY14-élevé et P2RY14- faibles selon le niveau d'expression médian de P2RY14. Une analyse de l'expression différentielle a été réalisée entre les deux groupes. Des analyses d'enrichissement GO et KEGG ont ensuite été effectuées afin de caractériser les fonctions biologiques et les voies associées à l'expression de P2RY14. L'analyse d'enrichissement GO a révélé que P2RY14 était associé à la matrice extracellulaire contenant du collagène, au développement du glomérule, au composant structural de la matrice extracellulaire et au développement rénal (Figure 4F, Tableau supplémentaire 3). L'analyse KEGG a en outre impliqué P2RY14 dans l'interaction entre la matrice extracellulaire et les récepteurs, l'adhésion focale, et les cascades du complément et de la coagulation (Figure 4G, Tableau supplémentaire 3).
De plus, l'analyse GSEA a montré que la voie de signalisation de NF-κB et la voie de signalisation de TNF étaient significativement enrichies dans le groupe à forte expression de P2RY14 , suggérant qu'une expression élevée de P2RY14 pourrait être associée à la signalisation inflammatoire dans la DNK (Figure 4H, Tableau supplémentaire 3).
Docking moléculaire exploratoire de la MC-1 avec P2RY14
Cinq composés candidats associés à P2RY14 ont été identifiés par criblage à l'aide de GeneCards et de DGIdb, et MC-1 a été sélectionné pour une analyse exploratoire de docking moléculaire (Figure 5A). En utilisant MC-1 comme ligand et P2RY14 comme récepteur, l'analyse de docking a prédit une pose de liaison potentielle de MC-1 au sein d'une poche candidate de P2RY14, avec un score Vina de −6,0 kcal/mol. La pose prédite impliquait des interactions avec des résidus Tyr, Lys, Asn, Asp et Glu, ainsi que la formation de sept liaisons hydrogène (Figure 5B–D).
Déclaration relative à la disponibilité des données
Les données utilisées dans cette étude sont accessibles au public. Les données de NHANES provenant des cycles d'enquête 2011–2018 sont disponibles auprès du National Center for Health Statistics. Les jeux de données transcriptomiques GSE30528, GSE142025 et GSE30529 sont accessibles publiquement dans la base de données Gene Expression Omnibus (GEO). Les résultats traités d'expression différentielle, d'enrichissement fonctionnel et d'analyse d'enrichissement des ensembles de gènes (GSEA) générés dans cette étude sont fournis dans les fichiers supplémentaires.
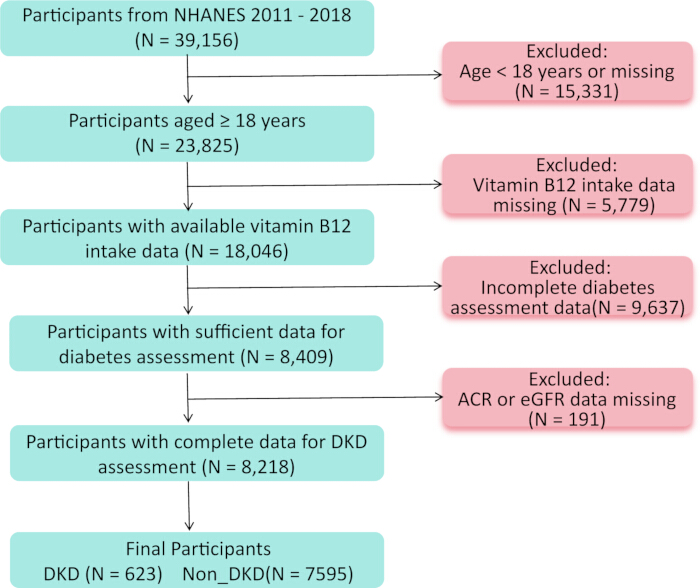
Figure 1 : Organigramme de la sélection des participants pour l'analyse NHANES. Cet organigramme illustre les critères d'exclusion successifs appliqués aux participants des cycles NHANES 2011–2018, ainsi que la population finale de l'étude incluse dans l'analyse. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
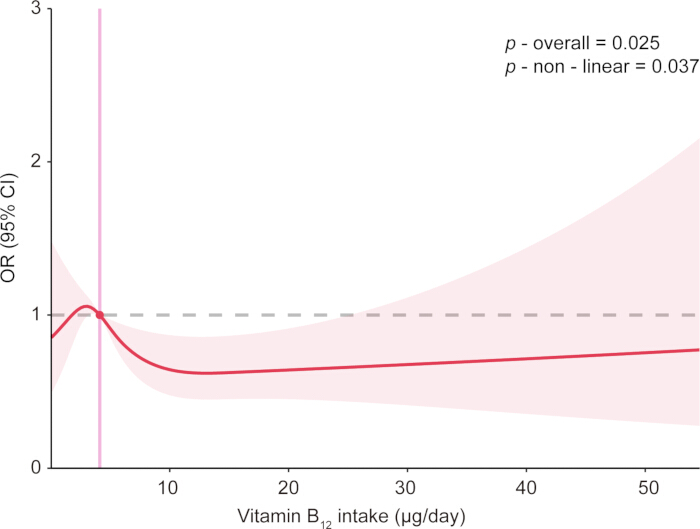
Figure 2 : Association non linéaire entre l'apport en vitamine B12 et la DND selon un modèle de spline cubique restreint. La ligne continue représente le rapport de cotes estimé pour la DND en fonction de l'apport alimentaire en vitamine B12, et la zone ombrée représente l'intervalle de confiance à 95 %. Le modèle a été ajusté à l'aide des covariables incluses dans le Modèle 3. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
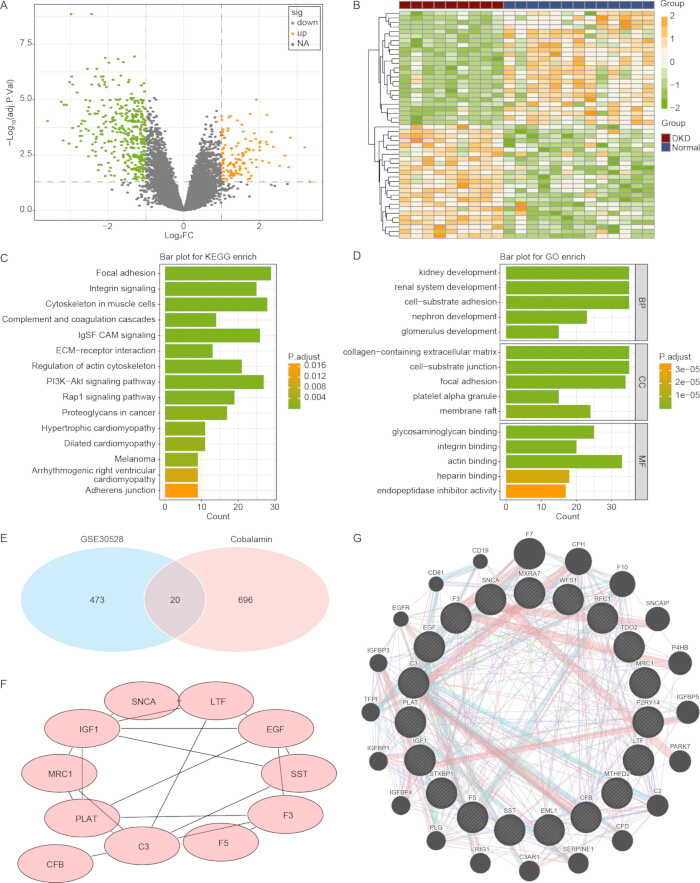
Figure 3 : Identification des gènes candidats liés à la vitamine B12 dans la néphropathie diabétique (DKD). (A,B) Nuage de points de type « volcano plot » et carte thermique illustrant les profils d'expression des gènes différentiellement exprimés (DEGs) entre les échantillons de néphropathie diabétique (DKD) et les échantillons normaux dans le jeu de données GSE30528. (C,D) Les 15 voies KEGG et termes GO les plus enrichis parmi les DEGs. (E) Analyse croisée entre les DEGs et les gènes liés à la vitamine B12. (F) Réseau d'interactions protéine-protéine (PPI). (G) Réseau GeneMANIA des 20 gènes liés à la vitamine B12. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
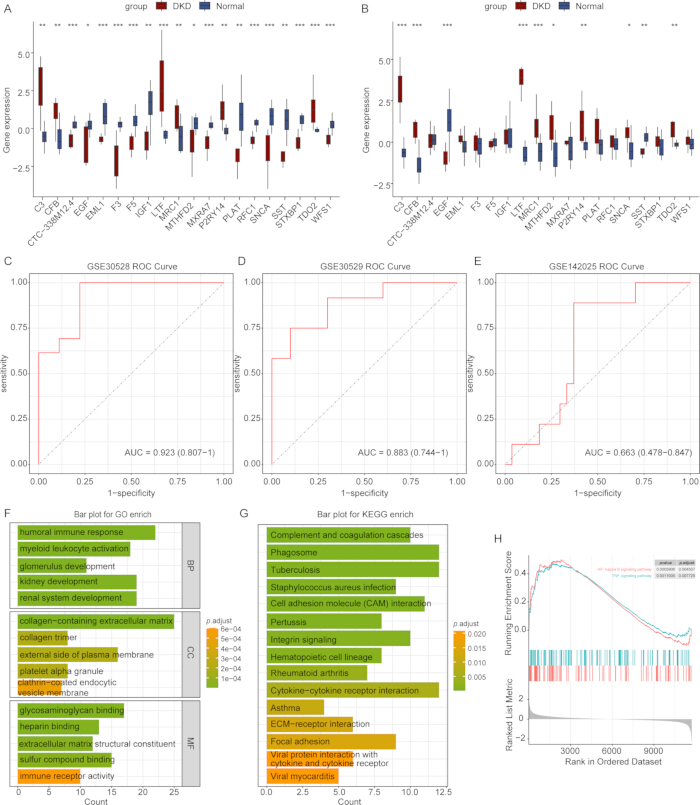
Figure 4 : Caractérisation exploratoire de P2RY14 comme gène candidat lié à la vitamine B12 dans la DNK. (A,B) Graphiques en boîte montrant les niveaux d'expression des gènes candidats communs dans les échantillons de DNK et les témoins normaux des jeux de données GSE30528 et GSE30529, respectivement. (C–E) Analyses des courbes ROC (caractéristique de fonctionnement du récepteur) de P2RY14 dans les jeux de données GSE30528, GSE30529 et GSE142025, respectivement. (F) Analyse d'enrichissement de l'ontologie génique (GO). (G) Analyse d'enrichissement des voies métaboliques de l'Encyclopédie de Kyoto des gènes et des génomes (KEGG). (H) Analyse GSEA des groupes P2RY14-fort et P2RY14-faible, montrant un enrichissement des voies de signalisation NF-κB et TNF dans GSE30528. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
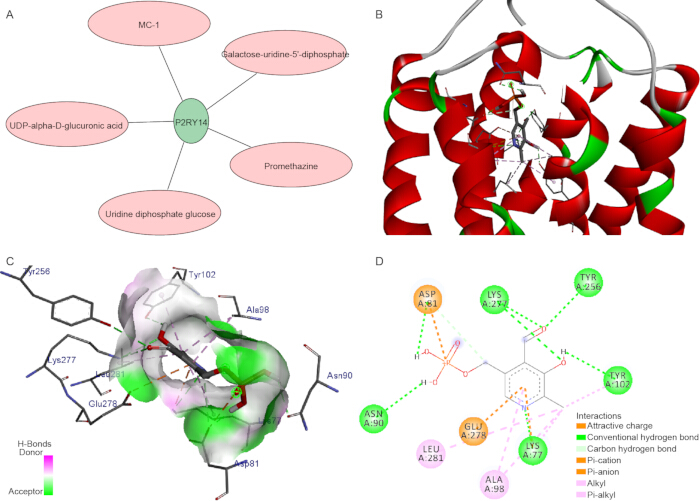
Figure 5 : Analyse d'interaction médicament-cible et analyse exploratoire de docking moléculaire de P2RY14. (A) Réseau d'interactions médicament-cible des composés associés à P2RY14. (B–D) Docking moléculaire de MC-1 avec la protéine P2RY14. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Tableau 1 : Caractéristiques de base de la population étudiée. Les caractéristiques démographiques, cliniques, biochimiques et diététiques des participants selon le statut de la DRC sont présentées. Les variables continues et catégorielles sont résumées à l’aide d’une analyse pondérée par sondage. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 2 : Caractéristiques de base des participants selon les quartiles d'apport en vitamine B12. Les caractéristiques démographiques, cliniques, biochimiques et alimentaires de la population étudiée sont présentées selon les quartiles de l'apport alimentaire en vitamine B12. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 3 : Association entre l'apport en vitamine B12 et l'état de DNPA chez les adultes américains. Les rapports de cotes (OR) et les intervalles de confiance à 95 % (IC) pour l'association entre l'apport alimentaire en vitamine B12 et l'état de DNPA sont présentés selon des modèles de régression logistique ajustés progressivement, le premier quartile d'apport en vitamine B12 (Q1) servant de groupe de référence. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 4 : Association entre l'apport en vitamine B12 et le statut de DNT dans les analyses de sous-groupes. Les rapports de cotes (RC) et les intervalles de confiance à 95 % (IC) pour la DNT sont présentés selon les quartiles d'apport en vitamine B12, stratifiés par âge, sexe, IMC, DFG-e, ACR, hypertension et sous-groupes d'hyperlipidémie, et ajustés selon les modèles spécifiés. Veuillez cliquer ici pour télécharger ce tableau.
Tableau 5 : Analyse de régression linéaire par segments à trois parties de l'association entre l'apport en vitamine B12 et la DNQ. Les associations entre l'apport alimentaire en vitamine B12 et la DNQ sont présentées pour les trois plages d'apport définies par les deux seuils déterminés par les données, à 3,24 et 8,36 μg/jour. Veuillez cliquer ici pour télécharger ce tableau.
Figure supplémentaire 1 : Analyses de sensibilité de l'association entre l'apport alimentaire en vitamine B12 et la DNK à l'aide de modèles de splines cubiques restreintes. (A–C) Modèles comportant trois nœuds. (D–F) Modèles comportant cinq nœuds. La ligne continue représente l'OR estimé, la zone ombrée représente l'IC à 95 %, et la ligne pointillée indique un OR = 1. Les valeurs p pour l'association globale et la non-linéarité sont indiquées dans chaque graphique.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 1 : Gènes différentiellement exprimés entre les échantillons de maladie rénale diabétique (DKD) et les échantillons normaux dans le jeu de données GSE30528. Les résultats d'expression différentielle pour les gènes identifiés avec |log₂FC| > 1 et FDR < 0,05 sont présentés conjointement avec le jeu de gènes liés à la cobalamine utilisé pour le criblage des gènes candidats.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 2 : Analyse d'enrichissement fonctionnel des gènes différentiellement exprimés dans la DNID. Les résultats de l'enrichissement de l'ontologie des gènes (GO) et de l'Encyclopédie de Kyoto des gènes et des génomes (KEGG) pour les gènes différentiellement exprimés identifiés dans le jeu de données GSE30528 sont présentés.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 3 : Résultats de l'enrichissement fonctionnel et de l'analyse d'enrichissement des ensembles de gènes associés à P2RY14 dans le jeu de données GSE30528. Les résultats de GO, de KEGG et de GSEA utilisés pour caractériser les fonctions biologiques et les voies associées à P2RY14 sont présentés.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
Dans cette analyse transversale représentative au niveau national portant sur 8 218 adultes américains, une ingestion plus élevée de vitamine B12 était associée à des cotes plus faibles de maladie rénale diabétique (DKD), bien que l'association ne suive pas un modèle linéaire simple de réponse à la dose. Les participants ayant une ingestion plus élevée de vitamine B12 avaient également tendance à présenter un niveau d'instruction plus élevé, une prévalence plus faible de l'hypertension et de la DKD, ainsi qu'une ingestion énergétique plus importante. Ces différences suggèrent que l'ingestion de vitamine B12 pourrait être accompagnée de caractéristiques démographiques, sanitaires et alimentaires plus larges, qu'il convient de prendre en compte lors de l'interprétation de l'association observée. Dans l'ensemble, nos résultats soutiennent une association entre l'ingestion de vitamine B12 et le statut de maladie rénale diabétique (DKD).
L'analyse fondée sur les quartiles a montré que les participants du Q4 présentaient des cotes significativement plus faibles de DKD que ceux du Q1, tandis qu'aucune association significative n'a été observée pour le Q2 ou le Q3. La tendance linéaire à travers les quartiles n'était pas non plus statistiquement significative (p pour la tendance = 0,086), suggérant que l'association pourrait ne pas suivre un modèle simple de relation dose-réponse linéaire. Conformément à ce résultat, l'analyse RCS a révélé une association non linéaire significative (p pour la non-linéarité = 0,037). L'analyse ultérieure de points de rupture a identifié deux seuils déterminés par les données à 3,24 et 8,36 μg/jour. Une association inverse significative a été observée uniquement dans la plage intermédiaire de 3,24 à 8,36 μg/jour, tandis qu'aucune association significative n'a été observée en dessous ou au-dessus de cette plage. Il est important de noter que ces seuils ont été dérivés à partir du jeu de données actuel et doivent être considérés comme des valeurs statistiques exploratoires plutôt que comme des seuils cliniquement établis. Par conséquent, l'intervalle de 3,24 à 8,36 μg/jour ne doit pas être interprété comme une plage d'apport optimale ou recommandée sans une validation externe. Dans l'ensemble, ces résultats soutiennent une association potentiellement non linéaire entre l'apport en vitamine B12 et la DKD, plutôt qu'une relation dose-réponse linéaire stable.
Les vitamines sont des micronutriments essentiels impliqués dans de nombreux processus métaboliques et ont été associées à la santé cardiométabolique30,31. Des études antérieures ont également suggéré que plusieurs vitamines pourraient être pertinentes pour le diabète et ses complications. Par exemple, le statut en vitamine B6 a été inversement associé au diabète et aux complications diabétiques31, tandis que des taux modifiés de vitamine D ont été observés dans la DNPK et la néphropathie diabétique32,33. Ces résultats soulignent l'importance potentielle du statut en micronutriments dans les anomalies métaboliques et rénales liées au diabète et fournissent un fondement pour examiner plus en détail la relation entre l'apport en vitamine B12 et la DNPK.
Des études épidémiologiques ont rapporté des résultats contradictoires concernant la relation entre le statut ou l'apport en vitamine B12 et les complications liées au diabète. Une analyse récente menée dans le cadre des NHANES a signalé une association positive entre la durée du diabète et les concentrations sériques de vitamine B1234. En revanche, une étude menée en Ouganda a montré que la progression de la maladie rénale chez des patients atteints de DT2 était associée à un apport plus faible en vitamine B12 et à des concentrations plus élevées d'homocystéine35. Wu et al. ont en outre rapporté qu'une supplémentation combinée en acide folique et en vitamine B12 chez des patients diabétiques présentant une néphropathie diabétique réduisait les taux sériques d'homocystéine et de malondialdéhyde, augmentait l'activité de l'oxyde nitrique et de la superoxyde dismutase, et diminuait l'excrétion urinaire de microalbumine36. D'autres études ont également signalé une prévalence relativement élevée de carence en vitamine B12 parmi les patients atteints de DT237,38,39,40,41. En accord avec l'hypothèse selon laquelle le statut en vitamine B12 pourrait être pertinent pour les complications diabétiques, notre étude a montré qu'un apport alimentaire plus élevé en vitamine B12 était associé à des cotes plus faibles de NDD.
L'association inverse observée entre l'apport en vitamine B12 et la DNK pourrait être biologiquement plausible, compte tenu du rôle de la vitamine B12 dans le métabolisme de l'homocystéine, la régulation du stress oxydatif, les réponses inflammatoires et le métabolisme énergétique cellulaire42,43. La carence en vitamine B12 a également été associée à des anomalies métaboliques, et un déséquilibre caractérisé par un apport excessif en folate combiné à une carence en vitamine B12 pourrait contribuer à un métabolisme glucidique altéré et au DT244,45. Ces observations soulignent l'importance d'un apport adéquat et équilibré en micronutriments pour la santé métabolique. Conformément à ce contexte, notre étude a révélé qu'un apport alimentaire plus élevé en vitamine B12 était associé à des cotes réduites de DNK. D'autres études sont nécessaires afin de préciser la relation dose-réponse entre l'apport en vitamine B12 et la santé rénale chez les personnes diabétiques, de valider les plages d'apport observées dans la présente étude dans des populations indépendantes, et de déterminer si la supplémentation en vitamine B12 présente une pertinence clinique dans cette population.
L'analyse transcriptomique a en outre identifié P2RY14 comme un gène candidat associé à la DN. P2RY14 présentait des valeurs relativement élevées de la surface sous la courbe (AUC) dans les jeux de données GSE30528 et GSE30529, tandis que sa capacité discriminante était plus modeste dans le jeu GSE142025. Étant donné les tailles d'échantillons limitées, ces résultats doivent être considérés comme préliminaires et nécessitent une validation dans de plus grandes cohortes indépendantes. De plus, les analyses d'enrichissement fonctionnel ont suggéré que P2RY14 pourrait être associé à l'organisation de la matrice extracellulaire, à l'adhésion focale et au développement rénal, ce qui appuie une investigation complémentaire de son rôle potentiel dans la DN.
Plus généralement, l'intégration de l'épidémiologie nutritionnelle basée sur les populations avec l'analyse transcriptomique fournit un cadre complémentaire pour relier les expositions alimentaires aux caractéristiques moléculaires associées aux maladies. Une telle approche pourrait faciliter la génération d'hypothèses en épidémiologie nutritionnelle et dans la recherche sur la DKD, et aider à hiérarchiser les cibles moléculaires candidates pour une validation expérimentale ultérieure. Toutefois, ces résultats restent exploratoires et n'établissent pas d'utilité clinique, diagnostique ou thérapeutique.
Une limitation majeure de la présente étude réside dans la composition hétérogène du groupe sans DKD, qui incluait des participants présentant différents stades de DM et de MRC, plutôt que de se limiter aux individus atteints de DM sans MRC. Des différences résiduelles concernant le statut diabétique, la fonction rénale et l'état de santé général ont donc pu influencer les associations observées. De plus, la conception transversale ne permet pas d'établir de lien temporel ou causal. Par conséquent, les résultats épidémiologiques doivent être interprétés comme des associations au niveau de la population avec le statut de DKD, et des études prospectives futures centrées sur les personnes diabétiques sont nécessaires. En outre, l'apport alimentaire en vitamine B12 a été estimé à partir de deux rappels alimentaires de 24 heures, qui peuvent être affectés par la variabilité quotidienne de l'alimentation et par des erreurs de mémoire, et ne reflètent donc peut-être pas complètement l'apport habituel à long terme en vitamine B12. Cela a pu introduire un certain degré d'erreur de mesure de l'exposition. Plusieurs limitations des analyses transcriptomiques et de la modélisation moléculaire doivent également être soulignées. Les données de NHANES et de GEO proviennent de populations indépendantes, et la régulation directe de P2RY14 par la vitamine B12 n'a pas été évaluée expérimentalement. Le chevauchement entre les gènes différentiellement exprimés liés au DKD et les gènes liés à la cobalamine a été utilisé pour un criblage exploratoire de candidats, et son enrichissement au-delà d'une attente aléatoire n'a pas été formellement testé. Par conséquent, P2RY14 doit être considéré comme un candidat générant des hypothèses, dont la pertinence biologique nécessite une validation supplémentaire. En outre, l'interaction prédite entre MC-1 et P2RY14 repose uniquement sur la modélisation moléculaire et doit être considérée comme exploratoire. Des études futures intégrant une intervention par la vitamine B12, des analyses fonctionnelles de P2RY14, ainsi que des tests directs de liaison ou de fonction réceptrice, tels que la résonance plasmonique de surface ou la thermophorèse à micro-échelle, sont nécessaires pour évaluer davantage ces relations prédites.
Conclusion
En conclusion, notre étude soutient une association entre la vitamine B12 apport et statut de la DNQ, avec une vitamine B plus élevée12 l'apport associé à une probabilité réduite de DRC et à une relation potentiellement non linéaire. L'analyse transcriptomique a en outre identifié P2RY14 comme un candidat générant des hypothèses associé à la DN, tandis qu'un dockage moléculaire exploratoire a préduit une liaison potentielle mode entre P2RY14 et MC-1. Ces résultats fournissent une base pour des investigations supplémentaires sur la relation entre la vitamine B12 apport et DJD, ainsi que la pertinence biologique potentielle de P2RY14.
Déclarations de divulgation
Les auteurs déclarent n'avoir aucun conflit d'intérêts.
Contribution des auteurs :
A.Z. a rédigé le manuscrit principal. G.Z. et J.D. ont préparé les figures et les tableaux. J.L. a relu et révisé le manuscrit. Tous les auteurs ont relu le manuscrit.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Matrice Affymetrix Human Genome U133A 2.0 | Affymetrix ; indexée par NCBI GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GPL571 | GPL571 (HG-U133A_2) |
| AlphaFold | Google DeepMind / EMBL-EBI | https://alphafold.ebi.ac.uk/ | / |
| AutoDock | Olson Laboratory, The Scripps Research Institute | https://autodock.scripps.edu/ | Version 4.2.6 (AutoDock 4.2.6) |
| autoReg | Package R | Version 0.3.3 (autoReg) | |
| CB-dock2 | / | http://183.56.231.194:8001/cb-dock2/index.php | CB-dock2 |
| clusterProfiler | Bioconductor ; Yu et al. | Version 4.8.3 (PMID : 22455463) | |
| Cytoscape | Consortium Cytoscape | https://cytoscape.org/ | Version 3.7.2 (PMID : 14597658) |
| DGldb | / | https://dgib.org/ | DGldb |
| GeneMANIA | Équipe GeneMANIA | http://genemania.org/ | GeneMANIA |
| Gene Expression Omnibus (GEO) | Centre national d'information en biotechnologie (NCBI), Bibliothèque nationale de médecine des États-Unis | https://www.ncbi.nlm.nih.gov/geo/ | GEO |
| GSE30528 | NCBI GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE30528 | Série GEO publique (GSE30528 ; BioProjet PRJNA154757) |
| GSE30529 | NCBI GEO | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE30529 | Série GEO publique (GSE30529) |
| GeneCards – La base de données des gènes humains | Institut Weizmann des sciences / LifeMap Sciences | https://www.genecards.org/ | GeneCards |
| GSEA / MSigDB | / | https://www.gsea-msigdb.org/gsea/index.jsp | v2025.1.Hs (GSEA / MSigDB) |
| Ontologie des gènes (GO) | Consortium Ontologie des gènes | https://geneontology.org/ | GO |
| Encyclopédie de Kyoto des gènes et des génomes (KEGG) | Kanehisa Laboratories | https://www.kegg.jp/ | KEGG |
| limma | Bioconductor ; Ritchie et al. | Version 3.56.2 (PMID : 25605792) | |
| Enquête nationale sur la santé et l'alimentation (NHANES) | Centre national de statistiques sanitaires (NCHS), Centres de contrôle et de prévention des maladies (CDC) | http://www.cdc.gov/nchs/nhanes/index.htm | 2011–2018 (quatre cycles 2011–2012 ; 2013–2014 ; 2015–2016 ; 2017–2018) |
| nhanesA | Package R | Version 1.0 (nhanesA) | |
| pROC | Package R | Version 1.18.5 (pROC) | |
| PubChem | NCBI, Bibliothèque nationale de médecine des États-Unis | https://pubchem.ncbi.nlm.nih.gov/ | PubChem |
| rms | Package R | Version 8.1-0 (rms) | |
| Logiciel R | Fondation R pour l'informatique statistique | https://www.r-project.org/ | Version 4.4.1 |
| segmented | Package R | Version 2.1-4 (segmented) | |
| STRING | Consortium STRING | https://string-db.org/ | Version 11.0 (PMID : 30476243) |
| survey | Package R | Version 4.4-8 (survey ; svydesign() ; svyglm()) | |
| tableone | Package R | tableone ; svyCreateTableOne() |
Références
- Forst T, et al. New strategies to improve clinical outcomes for diabetic kidney disease. BMC Med. 2022;20(1):337.
- Zheng Y, Ley SH, Hu FB. Global aetiology and epidemiology of type 2 diabetes mellitus and its complications. Nat Rev Endocrinol. 2018;14(2):88-98.
- Zhang Y, Sun X, Icli B, Feinberg MW. Emerging Roles for MicroRNAs in Diabetic Microvascular Disease: Novel Targets for Therapy. Endocr Rev. 2017;38(2):145-68.
- Lyssenko V, Vaag A. Genetics of diabetes-associated microvascular complications. Diabetologia. 2023;66(9):1601-13.
- Valencia WM, Florez H. How to prevent the microvascular complications of type 2 diabetes beyond glucose control. BMJ. 2017;356:i6505.
- Hung PH, Hsu YC, Chen TH, Lin CL. Recent Advances in Diabetic Kidney Diseases: From Kidney Injury to Kidney Fibrosis. Int J Mol Sci. 2021;22(21).
- McGrath K, Edi R. Diabetic Kidney Disease: Diagnosis, Treatment, and Prevention. Am Fam Physician. 2019;99(12):751-9.
- Lin YC, Chang YH, Yang SY, Wu KD, Chu TS. Update of pathophysiology and management of diabetic kidney disease. J Formos Med Assoc. 2018;117(8):662-75.
- Sabanayagam C, et al. Association of Diabetic Retinopathy and Diabetic Kidney Disease With All-Cause and Cardiovascular Mortality in a Multiethnic Asian Population. JAMA Netw Open. 2019;2(3):e191540.
- Saran R, et al. US Renal Data System 2018 Annual Data Report: Epidemiology of Kidney Disease in the United States. Am J Kidney Dis. 2019;73(3 Suppl 1):A7-A8.
- Miller RG, et al. Contemporary Estimate of Total Mortality and Cardiovascular Disease Risk in Young Adults With Type 1 Diabetes: The Pittsburgh Epidemiology of Diabetes Complications Study. Diabetes Care. 2016;39(12):2296-303.
- Lyon P, Strippoli V, Fang B, Cimmino L. B Vitamins and One-Carbon Metabolism: Implications in Human Health and Disease. Nutrients. 2020;12(9).
- Chazot C, Steiber AL, Kopple JD. Chapter 26 - Vitamin metabolism and requirements in chronic kidney disease and kidney failure. In: Kopple JD, Massry SG, Kalantar-Zadeh K, Fouque D, editors. Nutritional Management of Renal Disease (Fourth Edition): Academic Press; 2022. p. 413-65.
- Shakoor H, et al. Be well: A potential role for vitamin B in COVID-19. Maturitas. 2021;144:108-11.
- Green R, et al. Vitamin B(12) deficiency. Nat Rev Dis Primers. 2017;3:17040.
- Capelli I, et al. Folic Acid and Vitamin B12 Administration in CKD, Why Not Nutrients. 2019;11(2).
- Bamonti-Catena F, et al. Folate measurements in patients on regular hemodialysis treatment. Am J Kidney Dis. 1999;33(3):492-7.
- Andres E, Serraj K, Zhu J, Vermorken AJ. The pathophysiology of elevated vitamin B12 in clinical practice. QJM. 2013;106(6):505-15.
- Soohoo M, et al. Association of serum vitamin B12 and folate with mortality in incident hemodialysis patients. Nephrol Dial Transplant. 2017;32(6):1024-32.
- Zhang H, Liu N, Dang H. Association of the Controlling Nutritional Status (CONUT) score with all-cause and cause-specific mortality in patients with diabetic kidney disease: evidence from the NHANES 2009-2018. BMJ Open. 2024;14(4):e079992.
- Rahman HH, Niemann D, Munson-McGee SH. Association of albumin to creatinine ratio with urinary arsenic and metal exposure: evidence from NHANES 2015-2016. Int Urol Nephrol. 2022;54(6):1343-53.
- Phillips JA. Dietary Guidelines for Americans, 2020-2025. Workplace Health Saf. 2021;69(8):395.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. Omics : a journal of integrative biology. 2012;16(5):284-7.
- Szklarczyk D, et al. STRING v11: protein-protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 2019;47(D1):D607-D13.
- Shannon P, et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome research. 2003;13(11):2498-504.
- Zhao L, et al. Non-linear association between composite dietary antioxidant index and depression. Front Public Health. 2022;10:988727.
- da Silva Ebone R, Doleski PH, Jantsch MH, da Silveira RP, Leal DBR. P2Y14 receptor activation and neutrophil signaling: linking inflammation to systemic pathophysiology. Purinergic Signal. 2026;22(1):5.
- Lazarowski ER, Harden TK. UDP-Sugars as Extracellular Signaling Molecules: Cellular and Physiologic Consequences of P2Y14 Receptor Activation. Mol Pharmacol. 2015;88(1):151-60.
- Survase S, Bajaj I, Singhal R. Biotechnological Production of Vitamins. Food Technology and Biotechnology. 2006;44.
- Mascolo E, Verni F. Vitamin B6 and Diabetes: Relationship and Molecular Mechanisms. Int J Mol Sci. 2020;21(10).
- Delrue C, Speeckaert R, Delanghe JR, Speeckaert MM. The Role of Vitamin D in Diabetic Nephropathy: A Translational Approach. Int J Mol Sci. 2022;23(2).
- Wang H, et al. In vitro and in vivo inhibition of mTOR by 1,25-dihydroxyvitamin D(3) to improve early diabetic nephropathy via the DDIT4/TSC2/mTOR pathway. Endocrine. 2016;54(2):348-59.
- Raizada N, Jyotsna VP, Sreenivas V, Tandon N. Serum Vitamin B12 Levels in Type 2 Diabetes Patients on Metformin Compared to those Never on Metformin: A Cross-sectional Study. Indian J Endocrinol Metab. 2017;21(3):424-8.
- Kibirige D, Mwebaze R. Vitamin B12 deficiency among patients with diabetes mellitus: is routine screening and supplementation justified J Diabetes Metab Disord. 2013;12(1):17.
- Wu HHL, Wang AY. Vitamin B12 and chronic kidney disease. Vitam Horm. 2022;119:325-53.
- Kumthekar AA, Gidwani HV, Kumthekar AB. Metformin associated B12 deficiency. J Assoc Physicians India. 2012;60:58-60.
- Nervo M, et al. Vitamin B12 in metformin-treated diabetic patients: a cross-sectional study in Brazil. Rev Assoc Med Bras (1992). 2011;57(1):46-9.
- Bell DS. Metformin-induced vitamin B12 deficiency presenting as a peripheral neuropathy. South Med J. 2010;103(3):265-7.
- Pflipsen MC, et al. The prevalence of vitamin B(12) deficiency in patients with type 2 diabetes: a cross-sectional study. J Am Board Fam Med. 2009;22(5):528-34.
- Liu KW, Dai LK, Jean W. Metformin-related vitamin B12 deficiency. Age Ageing. 2006;35(2):200-1.
- Halczuk K, Kazmierczak-Baranska J, Karwowski BT, Karmanska A, Cieslak M. Vitamin B12-Multifaceted In Vivo Functions and In Vitro Applications. Nutrients. 2023;15(12).
- Mohan A, Kumar R, Kumar V, Yadav M. Homocysteine, Vitamin B12 and Folate Level: Possible Risk Factors in the Progression of Chronic Heart and Kidney Disorders. Curr Cardiol Rev. 2023;19(4):e090223213539.
- Krishnaveni GV, Veena SR, Karat SC, Yajnik CS, Fall CH. Association between maternal folate concentrations during pregnancy and insulin resistance in Indian children. Diabetologia. 2014;57(1):110-21.
- Yajnik CS, et al. Vitamin B12 and folate concentrations during pregnancy and insulin resistance in the offspring: the Pune Maternal Nutrition Study. Diabetologia. 2008;51(1):29-38.