Cette étude établit un modèle in vitro multicellulaire simplifié de barrière sang-tumeur (BTB) combinant une co-culture en Transwell et des sphéroïdes tumoraux en 3D, fournissant une plateforme physiologiquement pertinente pour l'étude des métastases cérébrales du cancer du sein et le criblage de thérapies ciblées.
Article de méthode
Un protocole basé sur des inserts de culture cellulaire pour la construction d'un modèle in vitro simplifié de barrière sang-tumeur multicellulaire dans le cas de métastases cérébrales du cancer du sein
* These authors contributed equally
Dans cet article
Résumé
Résumé
Les traitements efficaces contre les métastases cérébrales du cancer du sein (BCBM) restent limités, principalement parce que la barrière hémato-tumorale (BTB) restreint l'entrée de nombreux agents chimiothérapeutiques et ciblés dans les lésions métastatiques du système nerveux central. Afin de modéliser in vitro certaines caractéristiques de ce microenvironnement complexe, cette étude présente un protocole normalisé pour construire un modèle simplifié tridimensionnel de la BTB comprenant plusieurs types cellulaires. La méthode comprend trois étapes principales. Premièrement, un compartiment de barrière hémato-encéphalique (BBB) est construit à l’aide d’inserts pour culture cellulaire munis d’une membrane poreuse de 0,4 μm de diamètre. Des cellules endothéliales microvasculaires cérébrales humaines (HBMECs) sont semées sur la face basale de la membrane poreuse, puis un jour plus tard, des astrocytes humains (HA) et des cellules microgliales humaines HMC3 (HMC3) sont semées sur la face apicale. En utilisant les cellules SK-BR-3 comme exemple, les cellules cancéreuses du sein sont cultivées selon la méthode de la goutte pendante afin de former, après trois jours de culture, des sphéroïdes tumoraux tridimensionnels uniformes et réguliers. Les sphéroïdes sont ensuite transférés sur la face apicale d'une membrane poreuse recouverte d'une matrice de membrane basale, ce qui assure une séparation physique tout en permettant une communication chimique entre les cellules de la barrière et les sphéroïdes tumoraux pendant la co-culture. Cette plateforme permet un contrôle précis de la chronologie expérimentale et induit des modifications morphologiques et d’expression de marqueurs dans les astrocytes compatibles avec une réaction réactive péri-tumorale, tout en permettant d’évaluer l’intégrité de la barrière endothéliale et la perméabilité paracellulaire.
Introduction
Les métastases cérébrales constituent une complication fréquente au stade avancé de diverses tumeurs solides malignes, notamment le cancer du sein et le cancer du poumon1,2. Le pronostic est extrêmement sombre et les options thérapeutiques sont limitées1,2. Dans le système nerveux central sain, la barrière hémato-encéphalique (BHE) est une interface hautement spécialisée et dynamique formée principalement par des cellules endothéliales microvasculaires cérébrales étroitement jointes, dont l'intégrité et la fonction sont soutenues par la membrane basale vasculaire et des interactions coordonnées avec les péricytes, les astrocytes, les neurones, les microglies, les cellules de lignée oligodendrocytaire et d'autres composants de l'unité neurovasculaire3. Grâce aux jonctions serrées entre les cellules endothéliales et à l'assistance des cellules gliales périphériques, elle restreint strictement l'entrée de substances exogènes dans le système nerveux central4. Une fois que les cellules cancéreuses du sein se sont propagées et installées dans le cerveau, les lésions métastatiques cérébrales s'étendent, l'hypoxie locale augmente, les signaux inflammatoires s'intensifient et l'unité neurovasculaire (UNV) se remodèle, reconstruisant progressivement la barrière hémato-tumorale (BHT)5. Bien que la perméabilité locale de la BHT soit plus élevée que celle de la BHE, les différences de perméabilité aux molécules de différentes tailles, combinées à une perfusion sanguine inégale, entraînent une faible accumulation des médicaments dans les tumeurs cérébrales6. Par conséquent, comprendre la biologie de la BHT et développer des stratégies d'administration capables de franchir cette barrière sont devenus des priorités importantes en neuro-oncologie.
À ce jour, les caractéristiques et les mécanismes de transformation de la BHE ont été seulement partiellement décrites, et les options thérapeutiques efficaces contre les métastases cérébrales du cancer du sein (MCCS) restent limitées en pratique clinique. L'un des obstacles réside dans la disponibilité restreinte d'échantillons cliniques provenant de métastases cérébrales, ainsi que dans la rareté et la caractérisation fonctionnelle incomplète des modèles existants de la BHE. Les modèles animaux in vivo, en particulier les modèles murins7,8, sont encore largement utilisés dans la recherche sur la BHE. Toutefois, ces modèles présentent des limites, notamment des différences entre espèces, un faible débit, et des difficultés de standardisation et de reproductibilité, ce qui peut entraver les études mécanistiques et le développement de médicaments9,10. De plus, les modèles in vitro actuels de la BHE utilisent couramment des co-cultures de cellules tumorales et de cellules associées à la barrière, dans des systèmes d'inserts pour culture cellulaire ou des puces microfluidiques.
Ces modèles existants manquent souvent de la structure tridimensionnelle des tumeurs et sont donc limités dans la reproduction de caractéristiques spatiales pertinentes aux métastases cérébrales, notamment les gradients de densité cellulaire, les régions hypoxiques ou nécrotiques, la diffusion moléculaire restreinte et la distribution cellulaire hétérogène11,12. Afin d'introduire un composant tumoral tridimensionnel défini, nous avons utilisé un modèle de sphéroïde simple, reproductible et compatible avec les applications de criblage. En nous appuyant sur ce modèle, nous avons mis au point un compartiment BBB humain multicellulaire simplifié in vitro que nous avons intégré à des sphéroïdes tumoraux afin de construire un modèle BTB simplifié (Figure 1A) reproduisant certaines caractéristiques structurelles et cellulaires du microenvironnement métastatique cérébral. Ce modèle est facile à manipuler, permet des mesures quantitatives de la barrière et offre la possibilité de visualiser les changements spatiaux des populations d'astrocytes et de microglies associées à la tumeur.
Ce protocole décrit les étapes essentielles allant de la préparation et de la mise en culture des cellules à la génération de sphéroïdes tumoraux, en passant par la superposition d'une matrice de membrane basale, la préparation de témoins appariés et le transfert des sphéroïdes, fournissant ainsi un flux de travail normalisé pour la construction de ce modèle simplifié de la barrière hémato-encéphalique (BTB).
Protocole
Cette étude a été menée conformément aux principes de la Déclaration d'Helsinki et a été approuvée par le Comité d'éthique du Deuxième hôpital de l'Université médicale de Dalian (n° d'approbation : JW2026-019-01). Toutes les données liées aux patients ont été rendues anonymes avant l'analyse. Les outils de recherche utilisés dans ce protocole sont listés dans le Tableau des matériaux.
1. Préparation du modèle de la barrière hémato-encéphalique (BHE)
- Exigences générales
- Effectuer toutes les opérations dans une hotte à flux laminaire stérile et respecter scrupuleusement les techniques aseptiques.
- Utiliser des inserts pour culture cellulaire en plaques de 12 puits avec des membranes en PET ayant une taille de pore de 0,4 µm et une surface membranaire effective de 1,12 cm2.
- Revêtement en collagène de type I
- Ajouter 1 à 2 mL de solution de revêtement au collagène de type I dans chaque flacon ou boîte de culture cellulaire et répartir uniformément sur la surface inférieure.
- Ajouter 200 µL et 800 µL de solution de revêtement respectivement sur les côtés apical et basal de chaque insert pour culture cellulaire. Agiter doucement la plaque afin d'assurer un contact complet avec la membrane tout en évitant la formation de bulles sous la membrane.
- Incuber les récipients et inserts revêtus à 37 °C avec 5 % de CO₂ pendant 1 heure. Retirer la solution de revêtement et rincer deux fois avec du PBS.
- Conserver les flacons, boîtes et inserts pour culture cellulaire revêtus à 37 °C avec 5 % de CO₂ et les utiliser dans les 3 jours. Rincer une fois avec du PBS juste avant utilisation.
- Revêtir les récipients de culture cellulaire HBMEC et HA avec du collagène de type I avant la culture cellulaire. Les cellules HMC3-RFP ne nécessitent pas de revêtement au collagène de type I.
- Préparation de la solution de revêtement au collagène de type I
- Dissoudre 60 µL d'acide acétique glacial dans 50 mL d'eau ultrapure et refroidir la solution à 4 °C.
PRÉCAUTION : L'acide acétique glacial est corrosif. Le manipuler sous hotte chimique en portant des équipements de protection individuelle appropriés, y compris des gants, une blouse de laboratoire et une protection oculaire. Éliminer les déchets d'acide acétique conformément aux procédures institutionnelles de gestion des déchets chimiques. - Filtrer la solution à l’aide d’un filtre seringue de 0,22 µm, ajouter 500 µL de collagène de type I (9,45 mg/mL), bien mélanger, puis conserver à 4 °C jusqu’à utilisation.
- Dissoudre 60 µL d'acide acétique glacial dans 50 mL d'eau ultrapure et refroidir la solution à 4 °C.
- Préparation des cellules
- Cultiver les cellules HBMEC, HA et HMC3-RFP jusqu’à ce qu’elles atteignent une confluence de 80 % à 90 % avant utilisation.
PRÉCAUTION : Les lignées cellulaires d’origine humaine et les matériaux associés à des tissus humains doivent être manipulés comme potentiellement biohazard. Suivre les procédures institutionnelles de biosécurité et porter des équipements de protection individuelle appropriés. Éliminer les matériaux de culture contaminés comme déchets biohazard.
- Cultiver les cellules HBMEC, HA et HMC3-RFP jusqu’à ce qu’elles atteignent une confluence de 80 % à 90 % avant utilisation.
- Ensemencement des HBMEC au jour 0
- Détacher les HBMEC à l’aide d’une protéase de type trypsine recombinante (1×), centrifuger les cellules et resuspendre le culot pour obtenir une suspension monocellulaire.
- Déterminer la densité cellulaire et ajuster la suspension de manière à ce que 120 µL contiennent 1,5 × 10⁵ HBMEC pour chaque insert pour culture cellulaire.
- Retourner la plaque et déposer 120 µL de la suspension de HBMEC sur le côté basal de la membrane poreuse. Éviter la formation de bulles d’air lors de l’ensemencement (Figure 1B).
- Couvrir les puits, maintenir la plaque de 12 puits à l’envers et incuber pendant 6 heures.
- Replacer la plaque en position droite, ajouter 200 µL et 800 µL de milieu de culture complet ECM respectivement dans les chambres supérieure et inférieure, puis poursuivre l’incubation.
- Ensemencement des cellules HA et HMC3-RFP au jour 1
- Détacher les cellules HA avec une protéase de type trypsine recombinante (1×) et les cellules HMC3-RFP avec de la trypsine-EDTA 0,25 %. Centrifuger et resuspendre séparément les deux types cellulaires.
- Déterminer les densités cellulaires et combiner 2,0 × 10⁵ cellules HA avec 4,0 × 10³ cellules HMC3-RFP pour chaque insert pour culture cellulaire.
- Centrifuger les cellules mélangées, éliminer le surnageant et resuspendre le culot dans 200 µL de milieu complet mixte (milieu AM complet : milieu MEM complet = 5:1). Ajouter uniformément les 200 µL de suspension dans la chambre supérieure en évitant les bulles d’air (Figure 1B).
- Ajouter 800 µL de milieu de culture complet ECM dans la chambre inférieure, maintenir la plaque en position droite dans l’incubateur et renouveler le milieu quotidiennement.
2. Préparation de sphéroïdes tumorales tridimensionnelles
- Préparation des cellules SK-BR-3
- Cultiver les cellules SK-BR-3 jusqu'à ce qu'elles atteignent une confluence de 80 % à 90 % avant de passer à la formation de sphéroïdes.
- Détacher les cellules SK-BR-3 à l'aide de trypsine-EDTA 0,25 %, centrifuger les cellules et resuspendre le culot afin d'obtenir une suspension monocellulaire.
- Déterminer la densité cellulaire et ajuster la suspension de sorte que chaque goutte de 30 µL contienne 2 × 10⁴ cellules.
- Formation de gouttes suspendues
- Retourner une boîte de culture de 10 cm et distribuer des gouttes de 30 µL de la suspension cellulaire sur le couvercle de la boîte. Placer environ 20 gouttes par couvercle.
- Remettre le fond de la boîte en place puis retourner rapidement l'ensemble (Figure 1B). Repréparer les gouttes si celles-ci coulent du couvercle ou perdent leur forme.
- Culture des sphéroïdes
- Ajouter 5 mL de PBS dans la boîte et la placer dans l'incubateur. Ne pas perturber la boîte durant les deux premiers jours de culture.
- Pour une culture à long terme, ajouter 10 µL de milieu de culture complet à chaque goutte tous les deux jours.
- Ajouter le milieu en périphérie de chaque goutte à l'aide de la pointe de pipette et éviter tout contact avec les sphéroïdes tumoraux.
3. Préparation du modèle simplifié de barrière hémato-tumorale (BHT)
- Préparation des matériaux
- Recouvrir les récipients pour culture cellulaire et les inserts pour culture cellulaire (membrane PET, taille de pore de 0,4 µm) nécessaires avec du collagène de type I et les maintenir dans l’incubateur jusqu’à utilisation.
- Couper les extrémités de pointes de pipette de 200 µL avec des ciseaux et stériliser les pointes modifiées par autoclavage.
- Mise en place du modèle
- Jour 0–1 : Construire le modèle de BBB et préparer les sphéroïdes tumoraux comme décrit ci-dessus.
- Jour 2 : Décongeler la matrice de la membrane basale sur de la glace. Retirer le milieu de culture des deux chambres et rincer les deux chambres avec du PBS.
- Ajouter 800 µL de milieu complet ECM dans la chambre inférieure et 30 µL de matrice de membrane basale décongelée dans la chambre supérieure. Répartir uniformément la matrice de membrane basale sur la membrane poreuse.
- Incuber la plaque à 37 °C pendant 20 min, puis ajouter lentement 200 µL de milieu complet mixte (AM:MEM = 5:1) le long de la paroi de la chambre supérieure. Replacer la plaque dans l’incubateur (Figure 1B).
- Garder la matrice de membrane basale sur de la glace et travailler rapidement. Utiliser une pointe de pipette prérefroidie lors du prélèvement de la matrice de membrane basale.
- Contrôle apparié sans sphéroïde / avec matrice de membrane basale
- Préparer des inserts témoins en utilisant le même volume de matrice de membrane basale (30 µL), la même composition du milieu, les mêmes étapes de lavage, les mêmes durées d’incubation et le même calendrier de renouvellement quotidien du milieu que dans la condition BTB, mais sans transférer les sphéroïdes tumoraux au jour 3. Ainsi, le témoin apparié diffère de la condition BTB uniquement par la présence ou l’absence de sphéroïdes tumoraux, et non par l’exposition ou la manipulation de la matrice de membrane basale.
- Transfert des sphéroïdes tumoraux au jour 3
- Examiner les sphéroïdes tumoraux au microscope droit et vérifier qu’ils présentent une forme régulière et qu’ils ont formé des sphéroïdes compacts.
- Aspirer les sphéroïdes tumoraux dans des tubes microcentrifuges de 1,5 mL à l’aide d’une pointe de pipette coupée et les laver deux fois avec du PBS. Manipuler délicatement les sphéroïdes pour éviter de les endommager.
- Remplacer le milieu dans la chambre inférieure et retirer le milieu de culture de la chambre supérieure.
- Transférer cinq sphéroïdes tumoraux dans chaque chambre supérieure à l’aide d’une pointe de pipette coupée.
- Ajouter 200 µL de milieu complet de culture mixte (AM:MEM = 5:1) dans la chambre supérieure et agiter doucement la plaque pour éviter que les sphéroïdes entrent en contact ou fusionnent (Figure 1B).
- Maintenir la plaque dans l’incubateur et renouveler le milieu quotidiennement.
- Prélèvement des échantillons
- Prélever les échantillons au jour 7 pour les expériences ultérieures, ou ajuster le moment du prélèvement selon les besoins expérimentaux.
4. Mesure de la résistance électrique transendothéliale (TEER)
- Préparation des électrodes
- Chargez complètement le compteur de résistance transendothéliale (TEER) et immergez les électrodes « bâtonnets » dans de l'éthanol à 75 % pendant 15 min.
ATTENTION : L'éthanol est inflammable. Tenez l'éthanol à 75 % à l'écart des flammes nues, des étincelles et de toute source d'inflammation, et manipulez-le conformément aux procédures de sécurité chimique en vigueur dans l'établissement. - Exposez la cabine de sécurité biologique à la lumière ultraviolette pendant 30 min afin de la stériliser. N'exposez pas directement les électrodes à l'irradiation ultraviolette.
- Retirez les électrodes de l'éthanol, équilibrez-les dans du PBS pendant 15 min, puis séchez-les dans des conditions stériles.
- Chargez complètement le compteur de résistance transendothéliale (TEER) et immergez les électrodes « bâtonnets » dans de l'éthanol à 75 % pendant 15 min.
- Équilibration des inserts de culture cellulaire
- Retirez la plaque 12 puits contenant les inserts de culture cellulaire de l'incubateur et laissez-la reposer à température ambiante pendant 15 min avant la mesure.
- Mesure de la résistance
- Préparez un insert de culture cellulaire sans cellules (témoin) contenant respectivement 200 µL et 800 µL du même milieu de culture complet dans les compartiments supérieur et inférieur.
- Insérez délicatement les électrodes « bâtonnets » le long du bord de l'insert de culture cellulaire sans toucher la membrane poreuse ni le fond du puits.
- Rincez les électrodes avec du PBS et séchez-les. Mesurez chaque insert contenant des cellules en suivant la même procédure, puis enregistrez la résistance mesurée sous le symbole R₍mesurée₎.
- Calcul du TEER
- Calculez la valeur de la résistance électrique transendothéliale (TEER) à l'aide de la formule suivante13 :
TEER (Ω·cm²) = (R(mesurée) − R(vide) × S (1.1) - R(mesurée) est la résistance à travers la membrane poreuse contenant la couche cellulaire (Ω) ; R(vide) est la résistance à travers une membrane poreuse sans cellules (Ω) ; et S est la surface effective de la membrane (cm2). La surface effective de membrane utilisée dans cette étude est de 1,12 cm2.
- Calculez la valeur de la résistance électrique transendothéliale (TEER) à l'aide de la formule suivante13 :
5. Dosage de la perméabilité paracellulaire au dextran-FITC (direction apicale vers basolatérale)
- Préparation du dextran-FITC
- Préparer une solution de travail de dextran-FITC (4 kDa) à 2 mg/mL avant l'expérience et protéger celle-ci de la lumière.
- Interprétation du sens du test
- Interpréter le test actuel comme un indicateur d'intégrité de la barrière paracellulaire de type apical à basal, car les HBMEC sont fixées sur la face basale de la membrane, tandis que les astrocytes, les microglies et les sphéroïdes tumoraux occupent le compartiment apical.
REMARQUE : Pour les études destinées à imiter une exposition systémique, introduire le dextran-FITC ou un composé test dans le compartiment inférieur/basal tourné vers les cellules endothéliales, puis prélever des échantillons dans le compartiment supérieur/apical à l’aide d’un schéma d’échantillonnage distinct et validé, ainsi que d’un calcul de Papp.
- Interpréter le test actuel comme un indicateur d'intégrité de la barrière paracellulaire de type apical à basal, car les HBMEC sont fixées sur la face basale de la membrane, tandis que les astrocytes, les microglies et les sphéroïdes tumoraux occupent le compartiment apical.
- Lavage et équilibration
- Retirer tout le milieu de culture des deux compartiments. Ajouter 400 µL et 1 mL de milieu DMEM basal sans glucose préalablement réchauffé respectivement dans les compartiments supérieur et inférieur, rincer doucement une fois, puis jeter le milieu.
- Ajouter 400 µL et 1 mL de milieu DMEM basal frais sans glucose préalablement réchauffé respectivement dans les compartiments supérieur et inférieur. Équilibrer à 37 °C avec 5 % de CO₂ pendant 15 min, puis aspirer tout le liquide.
- Mesure de la perméabilité
- Ajouter 200 µL de solution de travail de dextran-FITC à 2 mg/mL dans le compartiment apical et 800 µL de milieu DMEM basal sans glucose dans le compartiment inférieur. Incuber à 37 °C avec 5 % de CO₂ pendant 30 min à l’abri de la lumière.
- Prélever 100 µL de milieu du compartiment inférieur de chaque insert expérimental après 30 min. Transférer trois aliquots de chaque insert dans une plaque noire de 96 puits et protéger celle-ci de la lumière.
- Préparation de la courbe étalon du dextran-FITC
- Préparer des étalons de dextran-FITC à 0, 0,5, 1,0 et 1,5 mg/mL. Ajouter 100 µL de chaque étalon dans une plaque noire de 96 puits en triplicata et protéger la plaque de la lumière.
- Mesure de la fluorescence et calcul du Papp
- Mesurer l'intensité de fluorescence à l’aide d’un lecteur multifonction de plaques microtitrables à une longueur d’onde d’excitation de 492 nm et une longueur d’onde d’émission de 520 nm. Enregistrer les données et calculer le coefficient de perméabilité apparent (Papp) à l’aide des équations suivantes14.
- En premier lieu, effectuer un ajustement linéaire des concentrations des solutions étalons de dextran-FITC (C) par rapport aux intensités de fluorescence correspondantes (A) afin d’obtenir une courbe étalon :
A = kC + b (1.2) - Ici, k représente la pente de la courbe étalon, et b représente l’ordonnée à l’origine.
- Ensuite, substituer l’intensité de fluorescence de l’échantillon (At) mesurée au temps t dans l’équation de la courbe étalon afin d’obtenir la concentration de dextran-FITC (Ca) du côté basolatéral au temps t. Puis substituer Ca dans la formule suivante pour calculer le Papp (cm/s) :
- Papp = (Ca × Va)/(t × S × C0) (1.3)
- Ici, Va est le volume total basolatéral (mL) ; t est le temps de perméation (s) ; S est la surface effective de la membrane poreuse (cm2) ; et C₀ est la concentration initiale du côté apical.
6. Coloration par immunofluorescence
- Fixation, lavage et perméabilisation
- Retirer tout le milieu de culture des inserts cellulaires, laver deux fois avec du PBS et aspirer tout liquide résiduel.
- Ajouter 200 µL et 800 µL de paraformaldéhyde à 4 % respectivement dans les chambres supérieure et inférieure, puis fixer les cellules toute la nuit à 4 °C.
ATTENTION : Le paraformaldéhyde est dangereux et doit être manipulé sous une hotte chimique certifiée, en portant des gants, une blouse de laboratoire et une protection oculaire. Recueillir séparément les déchets de paraformaldéhyde et les éliminer conformément aux procédures institutionnelles de gestion des déchets dangereux. - Retirer le paraformaldéhyde et ajouter 200 µL et 800 µL de PBS respectivement dans les chambres supérieure et inférieure. Laver trois fois sur agitateur, 5 minutes à chaque fois.
- Ajouter 200 µL et 800 µL de tensioactif non ionique à 0,5 % respectivement dans les chambres supérieure et inférieure, puis effectuer la perméabilisation pendant 10 minutes à température ambiante.
- Retirer la solution de tensioactif non ionique et laver trois fois avec du PBS, 5 minutes à chaque fois.
- Excision de la membrane et blocage
- Retourner les inserts cellulaires sur le couvercle d'une boîte de culture cellulaire, exciser soigneusement les membranes poreuses en suivant le bord avec un scalpel, puis les transférer dans une plaque de 24 puits.
- Ajouter 200 µL de BSA à 3 % dans du PBS pour recouvrir chaque membrane et bloquer pendant 90 minutes à température ambiante. Si nécessaire, découper les membranes en morceaux plus petits pour une coloration séparée.
- Incubation avec l'anticorps primaire
- Diluer les anticorps primaires dans un diluant standard pour anticorps et ajouter suffisamment de solution pour recouvrir complètement chaque membrane.
- Ajouter de l'eau ultrapure dans les puits vides environnants pour réduire l'évaporation, puis incuber les échantillons toute la nuit à 4 °C. Utiliser des échantillons sans anticorps primaire spécifique comme témoins négatifs.
- Le jour suivant, retirer la solution d'anticorps primaire et laver les membranes avec 1 mL de PBS sur agitateur, trois fois pendant 10 minutes chacune.
- Coloration avec l'anticorps secondaire et DAPI
- Diluer les anticorps secondaires dans un diluant pour anticorps fluorescent en conditions protégées de la lumière, recouvrir complètement les membranes et incuber pendant 90 minutes à température ambiante. Laver trois fois avec du PBS, 10 minutes à chaque fois, en protégeant de la lumière.
- Ajouter la solution de coloration DAPI prête à l'emploi pour recouvrir les membranes et incuber pendant 15 minutes à température ambiante. Laver trois fois avec du PBS, 10 minutes à chaque fois, en protégeant de la lumière.
- Déshydratation, montage et observation
- Ajouter un volume approprié de réactif de clarification pour cultures cellulaires 3D pour recouvrir les membranes et incuber pendant 15 minutes à température ambiante en conditions protégées de la lumière.
- Transférer les membranes sur des lames de verre à l’aide de forceps ophtalmiques, ajouter un milieu de montage antifade et monter les échantillons en conditions protégées de la lumière. Observer et acquérir des images des échantillons à l’aide d’un microscope confocal à balayage laser.
7. Présentation statistique
- Pour les comparaisons fonctionnelles, n = 3 indique trois réplicats biologiques indépendants par condition, chaque réplicat biologique étant considéré comme une unité expérimentale. Points de données individuels pour les trois réplicats biologiques. Les données sont présentées sous la forme moyenne ± ÉT. Réaliser les comparaisons à l’aide de tests t de Student non appariés bilatéraux, avec les valeurs exactes de t et de p.
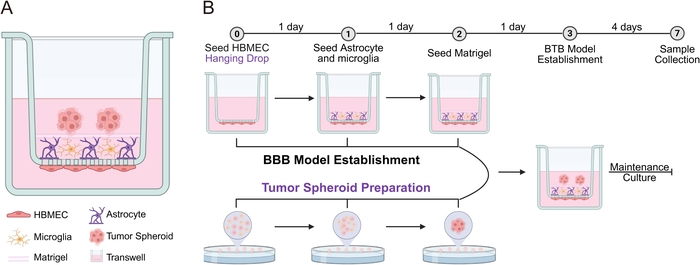
Figure 1 : Schéma illustratif et flux de travail de construction du modèle BTB. (A) Les HBMEC ont été semées sur la face basolatérale de la membrane poreuse de l'insert de culture cellulaire, tandis que les cellules HA et les cellules HMC3-RFP ont été réparties sur la face apicale. Une couche de matrice de membrane basale a été utilisée pour séparer les sphéroïdes tumoraux du compartiment de barrière cellulaire. Pour le témoin apparié sans sphéroïde, le même recouvrement de matrice de membrane basale et les mêmes manipulations ont été utilisés, mais les sphéroïdes tumoraux ont été omis. (B) Les numéros cerclés en haut indiquent les jours correspondants de culture. La construction de la BHE et la préparation des sphéroïdes tumoraux ont été réalisées simultanément. Après l'ajout d'une couche de matrice de membrane basale sur la surface supérieure de l'insert de culture cellulaire, les sphéroïdes tumoraux ont été transférés dans la chambre supérieure à l'aide d'une pipette à embout coupé. Le modèle BTB a ensuite été maintenu en culture jusqu'à 1 semaine avant la collecte des échantillons. Les échantillons peuvent généralement être collectés au jour 7 pour des expériences ultérieures. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Résultats
In the matched spheroid-free BBB control overlaid with the same amount of basement membrane matrix, HMC3-RFP signals were distributed relatively broadly across the apical cell layer (Figure 2). In the BTB condition, endpoint images showed HMC3-RFP signals mainly in regions not covered by tumor spheroids, with reduced signal beneath the spheroids and in immediately adjacent regions (Figure 2). These data demonstrate a spatial association between the presence of tumor spheroids and the endpoint distribution of HMC3-RFP cells. Because baseline HMC3-RFP distribution before spheroid introduction and longitudinal cell tracking were not assessed, the present data do not establish active microglial migration, repulsion, or tumor-driven exclusion.
Astrocytes also showed differences in marker signal and morphology in the BTB condition (Figure 2). Compared with the matched spheroid-free/basement membrane matrix control, representative images suggested stronger GFAP fluorescence in both peri-spheroid and distal regions. Astrocytes at the spheroid margin displayed enlarged cell bodies, thicker and elongated processes, and processes oriented toward the spheroid edge (Figure 2). These endpoint features are consistent with a reactive astrocyte-like phenotype, but they do not by themselves establish a specific reactive-astrogliosis program or its underlying mechanism. Morphologically similar peritumoral astrocytic structures were observed in human breast cancer brain-metastasis tissue sections, where immunofluorescence staining showed features consistent with peritumoral reactive astrogliosis (Figure 3A). To further characterize AQP4-associated astrocytic features, AQP4 immunofluorescence staining was performed in the matched spheroid-free BBB model and in the distal and peri-spheroid regions of the BTB model (Figure 3B). Representative images of the BBB model, the distal region of the BTB model, and the peri-spheroid region adjacent to the tumor spheroids are shown in the first, second, and third rows, respectively (Figure 3B). Within the BTB model, peri-spheroid astrocytes showed morphological differences compared with distal astrocytes. Taken together, the GFAP/AQP4 and morphological observations support tumor-spheroid-associated astrocytic remodeling within this model; the resemblance to patient tissue should be interpreted as phenotypic similarity rather than evidence that the model fully reproduces human peritumoral astrogliosis.
To evaluate tumor-spheroid-associated changes in endothelial junctional organization, we performed immunofluorescence staining of the tight-junction protein ZO-1 in the basal HBMEC layer of the simplified BBB and BTB models, using matched spheroid-free and spheroid-containing conditions overlaid with equal amounts of basement membrane matrix. Confocal imaging was focused on the region corresponding to the tumor spheroids (Figure 4A). In the matched spheroid-free control, ZO-1 signals between HBMECs showed a relatively continuous, linear distribution with clearly defined intercellular borders. In the BTB condition, ZO-1 fluorescence in regions corresponding to tumor spheroids appeared sparser, with focal disruption and discontinuity (Figure 4A). These endpoint images are consistent with local loss of tight-junction organization. However, without additional BTB-specific molecular markers or mechanistic perturbation experiments, the present data cannot distinguish specific BTB remodeling from nonspecific tumor-associated endothelial injury or barrier disruption.
At the functional level, TEER measurement and FITC-dextran permeability assays were performed simultaneously on Day 7 in the matched spheroid-free/basement membrane matrix control and the spheroid-containing BTB condition (Figure 4B). Individual values from all three independent biological replicates are displayed as scatter points in Figure 4B, with summary data presented as mean ± SD. The TEER value of the BTB condition (106.0 ± 9.5255 Ω·cm2, n = 3 independent biological replicates) was lower than that of the matched control (168.0 ± 5.1325 Ω·cm2, n = 3 independent biological replicates). Consistently, the apparent permeability coefficient (Papp) measured in the apical-to-basal FITC-dextran assay was higher in the BTB condition (5.851 ± 1.2080 × 10⁻3 cm/s, n = 3 independent biological replicates) than in the matched control (2.656 ± 1.0937 × 10⁻3 cm/s, n = 3 independent biological replicates). Two-tailed unpaired Student’s t-tests showed statistically significant differences [TEER: t(4) = 9.920, p = 0.0006; Papp: t(4) = 3.395, p = 0.0274] (Figure 4B). Within this experimental configuration, the concordant reduction in electrical resistance and increase in FITC-dextran permeability demonstrate reduced barrier integrity in the presence of tumor spheroids. These measurements alone do not establish a specific BBB-to-BTB remodeling mechanism, and the apical-to-basal FITC-dextran assay should not be interpreted as a physiological blood-to-tumor drug-delivery experiment.
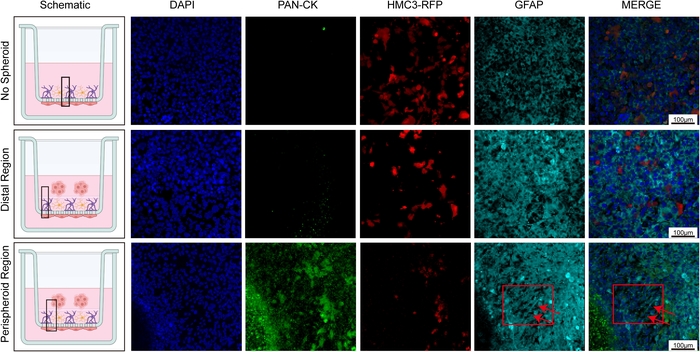
Figure 2: Immunofluorescence staining in the BTB model. Representative immunofluorescence images of Pan-CK and GFAP staining in the apical cell layers of the matched spheroid-free BBB control and BTB model, both overlaid with equal amounts of basement membrane matrix, with the HMC3-RFP signal also shown. The first column presents schematic illustrations, and the black square indicates the viewing area for confocal imaging. The first row shows the matched control without a spheroid (No Spheroid); the second row shows regions distal to the tumor spheroids in the BTB model (Distal Region); and the third row shows regions adjacent to the tumor spheroids in the BTB model (Peri-spheroid Region). Arrows indicate regions showing astrocytic morphological features consistent with a reactive phenotype. Cell nuclei were counterstained with DAPI (blue), tumor cells were labeled with pan-cytokeratin (Pan-CK; green), RFP-expressing microglia are shown in red, and GFAP staining is shown in cyan. Scale bar = 100 µm. Please click here to view a larger version of this figure.
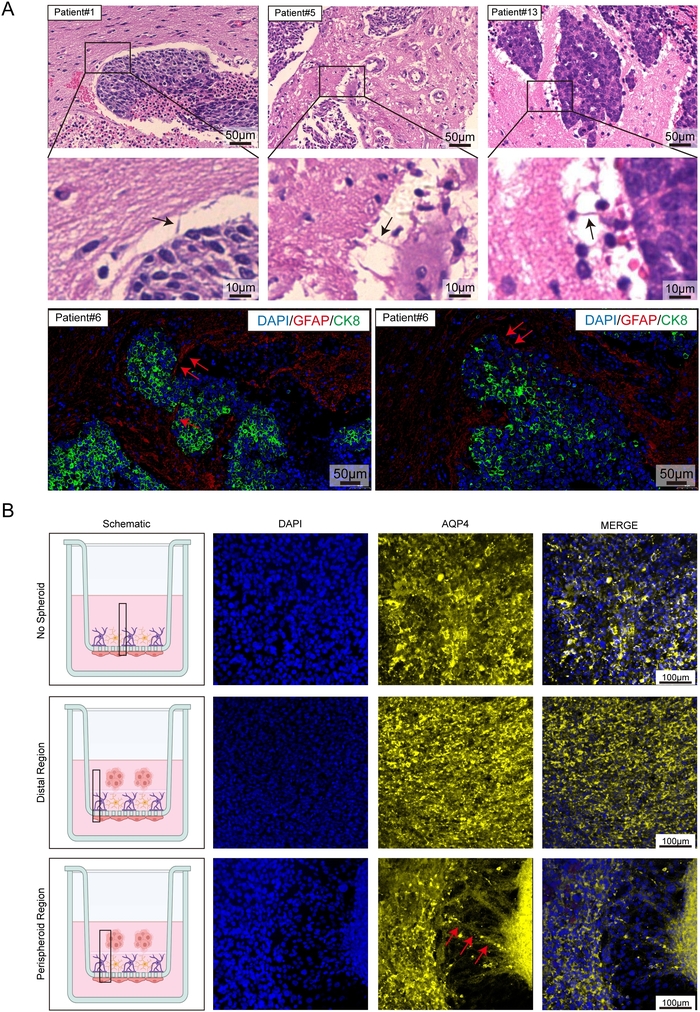
Figure 3: Immunofluorescence staining reveals morphological features consistent with peritumoral reactive astrogliosis in the BTB model. (A) Brain tissue sections from patients with breast cancer brain metastases were subjected to H&E staining. Astrocytic structures at the interface between tumor tissue and brain parenchyma or blood vessels showed morphological features consistent with peritumoral reactive astrogliosis. Black arrows indicate representative regions. Immunofluorescence staining further showed astrocytic morphological features consistent with a reactive phenotype; the red arrow highlights a representative region. Scale bars: 50 µm for the H&E-stained images in the first row, 10 µm for the H&E-stained images in the second row, and 50 µm for the immunofluorescence images in the third row. (B) AQP4 immunofluorescence staining was performed in the matched spheroid-free BBB model and in the distal and peri-spheroid regions of the BTB model. The first row shows representative images of the BBB model, the second row shows representative images of the distal region of the BTB model, and the third row shows representative images of the peri-spheroid region adjacent to the tumor spheroids. Arrows indicate astrocytic morphological changes in the peri-spheroid region. Nuclei were stained with DAPI and are shown in blue, while AQP4 is shown in yellow. Scale bar = 100 µm. Please click here to view a larger version of this figure.
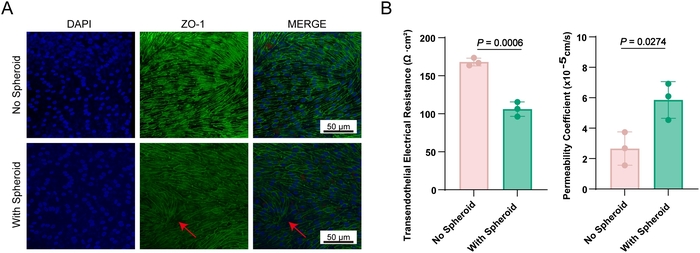
Figure 4: Functional characterization of the BTB model. (A) Immunofluorescence staining of ZO-1 in the basal endothelial cell layer of the BBB and BTB models overlaid with an equal amount of basement membrane matrix. The first column shows schematic diagrams, with black boxes indicating the regions selected for confocal imaging. The first row shows representative images of the basal cell layer in the BBB model without tumor spheroids (No Spheroid), and the second row shows representative images of the basal cell layer in the BTB model with tumor spheroids (With Spheroid). The red arrow highlights a region with sparse ZO-1 fluorescence and focal discontinuities. Nuclei were stained with DAPI and are shown in blue, while ZO-1 is shown in green. Scale bar = 50 µm. (B) TEER values and FITC-dextran (4 kDa) apparent permeability coefficients (Papp) of the matched spheroid-free BBB control (No Spheroid) and the BTB condition (With Spheroid), both overlaid with an equal amount of basement membrane matrix. n = 3 independent biological replicates per condition. Individual data points for all three biological replicates are shown, and summary data are presented as mean ± SD. FITC-dextran Papp values were obtained in the apical-to-basal direction. Please click here to view a larger version of this figure.
Discussion
Un modèle de sphéroïde a été utilisé pour introduire une composante tumorale tridimensionnelle offrant une organisation spatiale et des contraintes de diffusion que ne permet pas la culture conventionnelle de cellules tumorales en deux dimensions. Sa simplicité et sa reproductibilité le rendent également compatible avec des protocoles orientés vers le criblage. Les sphéroïdes ont été associés à un compartiment barrière humain à trois cellules comprenant des cellules endothéliales microvasculaires cérébrales, des astrocytes et des microglies, afin de construire un modèle in vitro humain simplifié de la barrière hémato-encéphalique (BHE). Ce système est facile à manipuler, compatible avec la culture en plaques multi-puits et les mesures quantitatives de la barrière (Figure 1), et permet de visualiser la morphologie cellulaire et la distribution spatiale par coloration immunofluorescente. Les modifications astrocytaires associées à GFAP/AQP4 observées, ainsi que leur ressemblance morphologique avec les astrocytes périvasculaires présents dans les tissus de métastases cérébrales du cancer du sein, appuient la pertinence de ce modèle pour l’étude de certaines interactions tumorales–gliales–endothéliales sélectionnées5, bien que ces résultats n’établissent pas une équivalence complète avec la BHE humaine complète.
La méthode de la goutte suspendue a été utilisée pour générer des sphéroïdes tumoraux, qui ont été co-cultivés avec des cellules endothéliales microvasculaires cérébrales humaines, des astrocytes humains et des microglies humaines afin de mettre en place une plateforme in vitro simplifiée du BTB humain multicellulaire. Dans les conditions testées, les sphéroïdes tumoraux étaient associés à une réduction de la résistance transépithéliale (TEER), à une augmentation de la perméabilité apicale-basale du dextran marqué à la FITC, à une réorganisation altérée de la protéine ZO-1 et à des modifications des marqueurs et de la morphologie astrocytaires. Les mesures de TEER et de perméabilité constituent des approches établies pour évaluer l'intégrité de la barrière dans les systèmes in vitro13,14. Ces résultats démontrent un déficit de la barrière associé aux sphéroïdes tumoraux ainsi qu’un remaniement glial au sein de ce système défini. Toutefois, cette plateforme du BTB ne reproduit pas complètement la transformation du BBB en BTB, la migration active des microglies ni un mécanisme moléculaire spécifique du remaniement du BTB. Cette plateforme doit donc être considérée comme un modèle expérimental pertinent pour la génération d'hypothèses et l'étude contrôlée des interactions tumeur–glie–endothélium, nécessitant des tests de transport directionnellement appropriés lors de la modélisation de l'administration systémique de médicaments.
Ce modèle simplifié présente plusieurs limites importantes. Premièrement, il ne contient pas l'unité neurovasculaire complète ni le microenvironnement cerveau-tumeur. Les péricytes, les neurones, une membrane basale/matrice extracellulaire physiologiquement complète et les cellules immunitaires circulantes sont absents. Les péricytes sont des régulateurs importants de la fonction neurovasculaire et de la barrière15,16,17, mais leur intégration dans un modèle humain in vitro standardisé reste difficile en raison de la disponibilité limitée et de la variabilité d’un lot à l’autre des péricytes humains primaires. Par conséquent, ce modèle ne devrait pas être décrit comme une BHE humaine complète, mais plutôt comme une plateforme expérimentale simplifiée. Deuxièmement, l'étude actuelle utilise la lignée cellulaire cancéreuse du sein SK-BR-3 comme unique modèle. Les phénotypes observés ne peuvent donc pas être généralisés à l'ensemble de la biologie des métastases cérébrales du cancer du sein (BCBM). Une validation à l’aide de sous-types supplémentaires de cancer du sein, de modèles présentant une tropisme cérébral et de sphéroïdes ou d’organoides dérivés de patients sera essentielle pour établir la généralisabilité et la pertinence clinique. Troisièmement, les données actuelles obtenues avec les HMC3-RFP correspondent à des observations ponctuelles en fin d’expérience et ne permettent pas de déterminer si le profil spatial observé résulte d’une migration active, d’une survie différentielle ou d’une distribution préexistante. Une imagerie en temps réel sur cellules vivantes enregistée de façon longitudinale serait nécessaire pour distinguer ces possibilités. Quatrièmement, les données sur la ZO-1, la résistance transépithéliale (TEER) et le dextran-FITC établissent un déficit de la barrière, mais ne permettent pas de distinguer un remaniement spécifique de la BHE d’une lésion endothéliale non spécifique ; des caractérisations moléculaires supplémentaires et des contrôles mécanistiques sont nécessaires. Cinquièmement, comme les HBMEC sont ensemencées sur la face basale de la membrane dans cette configuration, le test actuel de dextran-FITC de la lumière apicale vers la face basale constitue un indicateur d’intégrité de la barrière plutôt qu’un test physiologique de transport du sang vers la tumeur. Les études de délivrance systémique devraient introduire le traceur ou le médicament dans le compartiment inférieur/basal tourné vers l’endothélium et valider le transport vers le compartiment tumoral supérieur/apical. Enfin, les mesures fonctionnelles actuelles étaient basées sur trois réplicats biologiques indépendants par condition. Bien que cette conception permette de distinguer la réplication biologique de la réplication technique, l’augmentation du nombre de réplicats biologiques indépendants renforcerait davantage l’évaluation de la reproductibilité. L’intégration de ces améliorations, notamment des péricytes et des matériaux dérivés de patients, pourrait progressivement accroître la pertinence physiologique et translationnelle de la plateforme.
Déclarations de divulgation
Les auteurs n'ont aucun conflit d'intérêts à divulguer.
Remerciements
This work was supported by the Educational Reform Project of Liaoning Province (JG24DB110), the Life and Health Guidance Plan Project of Dalian (2025ZDJH01PT101), the 1+X Program of the Second Hospital of Dalian Medical University (2024LCJSYL07), and the United Foundation of the Dalian Institute of Chemical Physics, Chinese Academy of Sciences, and Dalian Medical University (DMU-2&DICP UN202509).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Trypsine-EDTA 0,25 % (1×) (détacher les cellules HMC3-RFP) | NCM Biotech | C100C1 | Utilisé pour détacher les cellules HMC3-RFP lors de la préparation cellulaire. |
| Tubes de centrifugation de 1,5 mL | Jet Biofil | CFT001015 | Utilisés pour recueillir, laver et manipuler les sphéroïdes tumoraux. |
| Plaque de culture cellulaire 12 puits | Jet Biofil | TCP011012 | Utilisée pour contenir les inserts de culture cellulaire 12 puits lors de la construction du modèle BBB/BTB. |
| Réactif de clarification pour culture cellulaire 3D | Thermo Fisher | V11326 | Utilisé pour clarifier les membranes de culture cellulaire colorées avant le montage et l'imagerie confocale. |
| Anticorps secondaire marqué Alexa Fluor 488 anti-lapin | Proteintech | RGAR002 | Anticorps secondaire fluorescent utilisé pour la détection en immunofluorescence des anticorps primaires issus du lapin. |
| Anticorps secondaire marqué Alexa Fluor 647 anti-souris | Proteintech | RGAM005 | Anticorps secondaire fluorescent utilisé pour la détection en immunofluorescence des anticorps primaires issus de la souris. |
| Diluant d'anticorps | Solarbio | A1800 | Utilisé pour diluer les anticorps primaires lors de la coloration en immunofluorescence. |
| Milieu de montage anti-fade | Solarbio | S2100 | Utilisé pour monter les membranes colorées et réduire la décoloration de la fluorescence pendant l'imagerie. |
| Supplément de croissance des astrocytes (AGS) | ScienCell | 1852 | Supplément utilisé pour la culture des astrocytes humains. |
| Milieu de culture des astrocytes (AM) | ScienCell | 1801 | Milieu de culture utilisé pour les astrocytes humains et comme composant du milieu mixte de la chambre supérieure. |
| Boîte de culture cellulaire | Servicebio | CCD-100 | Utilisée pour la culture cellulaire courante et la préparation de sphéroïdes tumoraux par méthode de goutte suspendue. |
| Collagène de type I | Corning | 354249 | Utilisé pour revêtir les récipients de culture et les inserts de culture cellulaire avant la semence cellulaire. |
| Lames couvre-objets | Citotest | 10212450C | Utilisées pour le montage et la préparation à la microscopie. |
| Solution de coloration DAPI | Servicebio | G1012-10ML | Utilisée pour la contre-coloration nucléaire lors de la coloration en immunofluorescence. |
| DMEM basique (1×) | Gibco | C11995500BT | Utilisé comme milieu de base dans le test de perméabilité au dextran marqué FITC. |
| Supplément de croissance des cellules endothéliales (ECGS) | ScienCell | 1052 | Supplément utilisé pour la culture des cellules endothéliales microvasculaires cérébrales humaines. |
| Milieu de culture des cellules endothéliales (ECM) | ScienCell | 1001 | Milieu de culture utilisé pour les HBMEC et la chambre inférieure du modèle BBB/BTB. |
| Sérum bovin fœtal (FBS) | Gibco | A5669701 | Supplément sérique utilisé dans les milieux de culture cellulaire complets. |
| Dextran marqué FITC (PM 4 000) | Beyotime | ST2930-50mg | Traceur fluorescent utilisé pour évaluer la perméabilité paracellulaire et calculer la Papp. |
| Diluant d'anticorps fluorescent | Solarbio | A1840 | Utilisé pour diluer les anticorps secondaires fluorescents lors de la coloration en immunofluorescence. |
| Acide acétique glacé | Sigma | 27225 | Utilisé pour préparer la solution de revêtement au collagène de type I. |
| HA | Astrocyte humain | NA | Composant astrocytaire pour évaluer les réponses morphologiques et marqueurs associés aux tumeurs |
| HBMEC | Cellules endothéliales microvasculaires cérébrales humaines | NA | Composant endothélial de la barrière BBB/BTB |
| HMC3-RFP | Ligne cellulaire de microglie humaine HMC3 marquée RFP | NA | Composant microglial pour le suivi par fluorescence |
| Matrigel | Corning | 354230 | Matrice de membrane basale utilisée comme couche superposée pour séparer les sphéroïdes tumoraux du compartiment des cellules de barrière. |
| Milieu complet MEM (avec NEAA) (10) | Procell System | PM150410B | Milieu utilisé comme composant du milieu de culture mixte de la chambre supérieure. |
| Lames porte-objets | Citotest | 188105 | Utilisées pour monter les membranes colorées excisées destinées à l'imagerie confocale. |
| Anticorps anti-GFAP humain de souris | EMD Millipore | MAB360-25μL | Anticorps primaire utilisé pour détecter la GFAP dans les astrocytes par immunofluorescence. |
| Paraformaldéhyde | Servicebio | G1101-500ML | Utilisé pour fixer les cellules avant la coloration en immunofluorescence. |
| Poudre de PBS (tampon phosphate-saline) | Servicebio | G0002-2L | Utilisée pour les étapes de lavage, d'équilibrage et de préparation tout au long du protocole. |
| Solution de pénicilline-streptomycine (P/S) | Servicebio | G4003-100ML | Supplément antibiotique utilisé dans les milieux de culture cellulaire complets. |
| Pipette | Eppendorf | 3123000250 | Utilisée pour la manipulation des liquides tout au long des procédures de culture cellulaire et des tests. |
| Pointes de pipette | MWM Bio | 800201 | Utilisées pour la manipulation courante des liquides ; des pointes modifiées à extrémité coupée sont utilisées pour le transfert des sphéroïdes tumoraux. |
| Anticorps polyclonal anti-PAN-CK humain de lapin | MedChemExpress | HY-P81164 | Anticorps primaire utilisé pour identifier les cellules tumorales par immunofluorescence. |
| Anticorps anti-ZO-1 humain de lapin | Proteintech | 21773-1-AP | Anticorps primaire utilisé pour évaluer l'organisation des jonctions serrées endothéliales par immunofluorescence. |
| SK-BR-3 | Ligne cellulaire de cancer du sein humain | NA | Composant sphéroïde tumoral pour la construction de la BTB |
| Insert de plaque de culture tissulaire (membrane PET, 0,4 μm), plaques 12 puits | Jet Biofil | TCS016012 | Insert poreux de culture cellulaire utilisé pour construire le modèle de co-culture BBB/BTB. |
| Appareil de mesure de la résistance transépithéliale (TEER) | Millicell | ERS-2 | Utilisé pour mesurer la résistance électrique à travers l'insert de culture cellulaire comme indicateur d'intégrité de la barrière. |
| TrypLE Express (1×) (détacher les cellules HBMEC et HA) | Gibco | 12605-010 | Utilisé pour détacher les cellules HBMEC et HA lors de la préparation cellulaire. |
Références
- Park M, et al. Breast cancer metastasis: mechanisms and therapeutic implications. Int J Mol Sci. 2022;23(12):6806. doi:10.3390/ijms23126806.
- Wang R, et al. The clinicopathological features and survival outcomes of patients with different metastatic sites in stage IV breast cancer. BMC Cancer. 2019;19(1):1091. doi:10.1186/s12885-019-6311-z.
- McConnell HL, Mishra A. Cells of the blood-brain barrier: an overview of the neurovascular unit in health and disease. Methods Mol Biol. 2022;2492:3–24.
- Dong X. Current strategies for brain drug delivery. Theranostics. 2018;8(6):1481–1493.
- Gril B, et al. Reactive astrocytic S1P3 signaling modulates the blood-tumor barrier in brain metastases. Nat Commun. 2018;9(1):2705. doi:10.1038/s41467-018-05030-w.
- Pitz MW, Desai A, Grossman SA, Blakeley JO. Tissue concentration of systemically administered antineoplastic agents in human brain tumors. J Neurooncol. 2011;104(3):629–638.
- Adkins CE, et al. Characterization of passive permeability at the blood-tumor barrier in five preclinical models of brain metastases of breast cancer. Clin Exp Metastasis. 2016;33(4):373–383.
- Lockman PR, et al. Heterogeneous blood-tumor barrier permeability determines drug efficacy in experimental brain metastases of breast cancer. Clin Cancer Res. 2010;16(23):5664–5678.
- Song H-T, et al. Rat model of metastatic breast cancer monitored by MRI at 3 tesla and bioluminescence imaging with histological correlation. J Transl Med. 2009;7:88. doi:10.1186/1479-5876-7-88.
- Miarka L, Valiente M. Animal models of brain metastasis. Neurooncol Adv. 2021;3(Suppl 5):v144–v156.
- Kim J-H, et al. Inflammatory mammary carcinoma with metastasis to the brain and distant organs in a spayed Shih Tzu dog. J Vet Diagn Invest. 2011;23(5):1079–1082.
- Wiese DA, Thaiwong T, Yuzbasiyan-Gurkan V, Kiupel M. Feline mammary basal-like adenocarcinomas: a potential model for human triple-negative breast cancer (TNBC) with basal-like subtype. BMC Cancer. 2013;13:403. doi:10.1186/1471-2407-13-403.
- Srinivasan B, et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. 2015;20(2):107–126.
- Harding IC, et al. Developing a transwell millifluidic device for studying blood-brain barrier endothelium. Lab Chip. 2022;22(23):4603–4620.
- Liu X, et al. The role of neurovascular unit damage in the occurrence and development of Alzheimer’s disease. Rev Neurosci. 2019;30(5):477–484.
- Nikolakopoulou AM, et al. Pericyte loss leads to circulatory failure and pleiotrophin depletion causing neuron loss. Nat Neurosci. 2019;22(7):1089–1098.
- Bell RD, et al. Pericytes control key neurovascular functions and neuronal phenotype in the adult brain and during brain aging. Neuron. 2010;68(3):409–427.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible