Cette étude vise à explorer les mécanismes moléculaires potentiels sous-jacents aux effets antioxydants et anti-inflammatoires de l'amygdaline dans un modèle de pelade chez des souris C3H/HeJ et dans un modèle de lésion de mélanocytes épidermiques primaires humains induit par le H2O2.
Article de recherche
L'amygdaline régule la signalisation de FOXO3a pour inhiber le stress oxydatif et améliorer l'alopécie areata chez la souris
* These authors contributed equally
Dans cet article
Résumé
Résumé
Cet article vise à explorer le mécanisme de l'effet thérapeutique de l'amygdaline (AMG) sur l'alopécie areata (AA). La coloration à l'hématoxyline-éosine a été utilisée pour évaluer la toxicité hépatonéphrétique de l'AMG. Après établissement du modèle d'AA chez des souris C3H/HeJ et H2O2-mélanocytes primaires épidermiques humains (HPEM) endommagés, et après l'intervention par AMG, la teneur en espèces réactives de l'oxygène (ERO) ainsi que les niveaux de la protéine et du gène de la boîte forkhead O3A (FOXO3a) ont été mesurés. Des kits biochimiques ou dosage immuno-enzymatique ont été utilisés pour détecter les concentrations de superoxyde dismutase (SOD), de catalase (CAT), de glutathion peroxydase 4 (GPX-4), de malondialdéhyde (MDA), d'interleukine-15 (IL-15) et d'interféron-gamma (IFN-γ), et l'interleukine-6 (IL-6). Un immunoblotting a été réalisé pour évaluer les niveaux de CMH I, d'IL-15, de FOXO3a, de SOD, de CAT, de GPX-4 et d'IFN-γ, IL-6 et IL-15. Une analyse ChIP-PCR a été réalisée afin d'évaluer l'enrichissement d'AMG au niveau des promoteurs de SOD, CAT et GPX-4 dans FOXO3a. Parallèlement, les niveaux de ROS, d'apoptose ainsi que les niveaux protéique et génique de FOXO3a, SOD, CAT et GPX-4 dans les cellules HPEM présentant une faible expression de FOXO3a ont été étudiés. AMG ne présente aucune toxicité potentielle hépatique ou rénale et peut réduire l'expression des protéines MHC I et IL-15 dans la peau, ainsi que le taux sérique d'IL-15. AMG peut augmenter l'expression de la protéine et du gène FOXO3a dans la peau, ainsi que les niveaux de SOD, de CAT et de GPX-4, tout en diminuant les concentrations de ROS et de MDA. AMG peut inhiber le MHC I et l'IFN-γ, IL-6 et IL-15, MDA, apoptose et production de ROS dans les HPEM, et augmentent les teneurs en SOD, CAT et GPX-4. Importamment, l'AMG peut upréguler l'expression des gènes et des protéines FOXO3a, SOD, CAT et GPX-4, et enrichir FOXO3a au niveau des promoteurs de SOD, CAT et GPX-4. Ces données suggèrent que l'AMG peut favoriser l'expression de FOXO3a et inhiber le stress oxydatif ainsi que les réponses inflammatoires, améliorant ainsi l'AA chez les souris C3H/HeJ.
Introduction
Trouble auto-immun de caractérisé par une perte de cheveux soudaine et non cicatricielle, l'alopécie areata (AA) a une prévalence mondiale d'environ 2 à 3 %, et compte plus de 30 millions de patients en Chine1. Les données épidémiologiques montrent que la maladie peut toucher les individus de tous âges, mais qu'elle présente une prévalence plus élevée chez les jeunes adultes, environ 60 % des patients connaissant leur premier épisode avant l'âge de 20 ans, avec un ratio homme-femme quasi égal1,2. Dans le monde, l'incidence annuelle de l'AA est d'environ 0,2 à 0,3 %, dont 40 % de cas d'AA unilatérale, 35 % d'AA multilatérale, 5 % d'alopécie totale et 2 % d'alopécie universelle3,4,5. En ce qui concerne les complications, environ 30 % des patients présentent des dépressions unguéales, des sillons longitudinaux et d'autres lésions, et le taux de comorbidité avec des maladies auto-immunes telles que les troubles thyroïdiens et le vitiligo dépasse celui observé dans la population générale6,7. Sur le plan des effets néfastes, l'AA n'affecte pas seulement l'apparence, mais est également susceptible de provoquer des troubles psychologiques tels que la dépression et l'anxiété, environ 70 % des patients nouvellement diagnostiqués ayant vécu un événement stressant majeur dans les trois mois précédant l'apparition des symptômes8,9. En l'absence de traitement prolongé, les patients peuvent évoluer vers une alopécie totale ou universelle, ce qui affecte gravement leur fonction sociale et leur qualité de vie10.
Actuellement, la médecine occidentale utilise principalement une combinaison de médicaments locaux, de traitements oraux, de thérapie physique et de greffe de cheveux pour le traitement de l’alopécie areata11,12. Le traitement local comprend essentiellement la solution de minoxidil et les corticostéroïdes (comme la crème de propionate de fluticasone), qui stimulent les follicules pileux et inhibent les réponses immunitaires locales afin de favoriser la repousse des cheveux, mais une utilisation prolongée peut entraîner des effets indésirables tels que l’atrophie cutanée13,14. Chez les patients présentant une maladie progressive, des immunosuppresseurs oraux (comme la prednisone et la cyclosporine) peuvent réguler efficacement la réponse immunitaire systémique, mais une surveillance régulière de la fonction hépatique et rénale est nécessaire12,15. En ce qui concerne la thérapie physique, l’irradiation ultraviolette moyenne à bande étroite et la thérapie par laser de basse énergie améliorent la microcirculation pour favoriser la croissance des cheveux, mais plusieurs séances sont requises et l’efficacité varie d’un individu à l’autre16,17. Pour les cas réfractaires, la chirurgie de greffe de cheveux permet de transplanter des follicules pileux sains vers les zones dégarnies, mais comporte un risque d’échec de la greffe et nécessite un entretien médicamenteux18. Les avantages du traitement par la médecine occidentale résident dans son action rapide et sa forte standardisation, en particulier pour les formes localisées précoces d’alopécie areata19. Toutefois, ses inconvénients incluent une tendance au rebond avec les traitements hormonaux, des effets secondaires importants liés aux immunosuppresseurs, ainsi qu’une efficacité limitée chez les patients atteints de calvitie totale ou d’alopécie universelle20,21. De plus, la durée du traitement est longue (généralement de 3 à 6 mois) et le coût élevé (par exemple, le coût annuel des inhibiteurs de JAK ou des agents biologiques dépasse 100 000 yuans), ce qui limite également son utilisation généralisée19,22. Pour toutes ces raisons évoquées ci-dessus, les auteurs doivent impérativement explorer de nouveaux médicaments ciblés.
Le stress oxydatif contribue largement au mécanisme pathogène de l’alopécie areata (AA). Au cours de la synthèse du pigment des mélanocytes, une grande quantité de peroxyde d’hydrogène (H2O2) est produite23,24. Dans des conditions normales, celui-ci peut être éliminé par des enzymes antioxydantes (telles que la superoxyde dismutase (SOD) et la catalase (CAT))25. Toutefois, chez les personnes atteintes d’AA, l’activité des enzymes antioxydantes est souvent réduite, entraînant l’accumulation de produits oxydatifs et provoquant des lésions de l’ADN ainsi que l’apoptose cellulaire26,27. Cet état de stress oxydatif active ensuite la réponse inflammatoire, libérant des médiateurs pro-inflammatoires (tels que le TNF-α et l’IFN-γ), créant ainsi un cercle vicieux entre stress oxydatif et inflammation28. La réponse inflammatoire attaque les follicules pileux par l’intermédiaire des lymphocytes T, provoquant l’entrée des follicules pileux en phase de repos et leur chute29. Des essais cliniques ont montré que les patients atteints d’AA présentent souvent d’autres maladies auto-immunes (telles que les affections thyroïdiennes)30, suggérant qu’un déséquilibre immunitaire systémique constitue un facteur déclenchant essentiel. En outre, le stress oxydatif et l’inflammation favorisent conjointement l’apoptose des cellules des follicules pileux, et le désordre des signaux apoptotiques nuit davantage à la capacité régénérative du follicule pileux, empêchant la repousse des cheveux31. Par conséquent, le traitement de l’AA doit prendre en compte l’action antioxydante, l’effet anti-inflammatoire et la régulation des voies apoptotiques afin de rompre ce cercle vicieux.
L'amygdaline (AMG) est un composé glycoside cyanogène naturel, présent principalement dans les graines de plantes appartenant à la famille des Rosaceae (comme les noyaux d'abricot, d'amande, de pêche et de néflier)32,33,34. Des études antérieures ont montré que l'AMG peut améliorer le psoriasis en renforçant la fonction barrière de la peau35. Par ailleurs, les effets anti-apoptotiques et anti-stress oxydatif de l'AMG rendent possible son utilisation dans le traitement de l'AA36,37. Des preuves antérieures ont également confirmé que l'AMG peut inhiber la réponse inflammatoire afin d'atténuer les symptômes de l'AA chez des souris C3H/HeJ38. Toutefois, le mécanisme moléculaire par lequel l'AMG inhibe l'inflammation et atténue le stress oxydatif pour atténuer l'AA n'a pas été largement rapporté. Cette étude a principalement mis en évidence les événements liés au stress oxydatif médiés par la voie de signalisation de la forkhead box O3A (FOXO3a) suite à une intervention par l'AMG, dans le traitement d'un modèle d'AA chez des souris C3H/HeJ et d'un modèle de lésion de mélanocytes épidermiques primaires humains (HPEMs) induit par le H2O2.
Protocole
Ethics approval and consent to participate
The experimental protocols involving animals were authorized by the Ethics Committee of Scientist Biotechnology Co., Ltd. (Ethical Approval Number: SYST-2024-014), following the ARRIVE 2.0, NIH Guide for the Care and Use of Laboratory Animals. And the Ethics Committee of Sichuan Provincial People’s Hospital granted approval for the ethical use of human clinical samples for in vitro experiments (Ethical Approval Number: 2024103). Informed consent was obtained from all tissue donors. All commercial details of the reagents and the equipment used in this study are provided in the Table of Materials.
Construction of the AA model in C3H/HeJ mice and AMG administration
Based on the previous literature, the AA model of C3H/HeJ mice was induced and treated with AMG38,39. In brief, thirty female C3H/HeJ mice (6–8 weeks old) underwent a one-week acclimatization period before being randomly assigned to five distinct groups: Control, AA, AMG-L, AMG-M, and AMG-H. Except for the control group, the AA model in the remaining four groups was established by applying 0.05 g imiquimod cream to the murine dorsal skin. This application was performed three times weekly, accumulating to a total of nine doses. The area of the skin that was applied was 1.5 cm × 1.5 cm. Mice in both the control and AA cohorts received 0.02 mL/g of normal saline by gavage daily. While the mice in AMG groups were given intragastric injections of 60, 90, and 120 mg/kg daily. The administration period is 21 days. For the general observation and assessment of the AA model, a well-defined circular alopecia patch ≥ 1 cm in diameter, with no scarring or severe inflammation, and with broken hair shafts, is required. If mice show diffuse whole-body depilation, severe skin ulceration, or spontaneous rapid hair regrowth, they are excluded.
HPEMs
Following the previous method40, healthy skin tissues from patients who underwent circumcision in the hospital were selected and immersed in 75% alcohol for 5 min. The skin tissues were then repeatedly washed with PBS containing ampicillin (100 U/mL) and streptomycin sulfate (100mg/mL), and incubated in dispase II solution at 4°C overnight for digestion. The separated and isolated epidermal layers were minced and filtered via a sterile membrane to yield the cell suspension. After centrifugation, the sedimentary lower-layer cells were harvested and subsequently resuspended in melanocyte 254 medium without serum and reseeded at a density of approximately 5 × 10⁵ in culture flasks and cultured in a CO2 incubator. After three passages, pure melanocytes were employed for subsequent experiments.
Establishment of H2O2-induced human melanocyte oxidative stress injury model and AMG intervention
Human melanocytes with a fusion degree of 60% to 80% were divided into a control group and groups with different concentrations of H2O2 (200, 400, 600, 800, and 1000 µM). After a 24-h incubation, cell viability was assessed by the CCK-8 method. Subsequently, the optimal concentration of H2O2 was used to establish the melanocyte oxidative stress model, and different concentrations of AMG (0.1, 0.25, 0.5, 1, 2.5, 5, and 10 mg/mL) were added for a 24-hour culture. Cell viability was then chosen to assess and screen the concentration of AMG.
HE examination
Mouse liver and kidney tissues were fixed in 4% paraformaldehyde for 24 h and embedded with paraffin, followed by a dehydration process in the following steps: 70% ethanol for 4 h, 80% ethanol for 2 h, 90% ethanol for 2 h, 95% ethanol for 2 h, anhydrous ethanol, twice, 1 h each time; xylene, twice, 30 min each time38,39,41. Then, 4-µm paraffin sections underwent H&E staining, were dehydrated, cleared, and mounted with neutral gum. A 3D HISTECH scanner was employed to digitize the tissue sections, and images at 20× and 40× magnifications were captured.
Enzyme-linked immunosorbent assay (ELISA) and biochemical detection
Skin tissues were homogenized in a buffer solution at a 1:9 (w/v) ratio, then centrifuged at 1006–1789 × g for 10 min. After protein quantification in serum, skin tissue extracts, and cell supernatants using BCA, the levels of MDA, IL-6, IL-15, and IFN-γ were assessed using the corresponding ELISA kits. And the enzyme activities of SOD, CAT, and GPX-4 were detected according to the instructions of the respective biochemical kits.
Flow cytometry for detecting reactive oxygen species (ROS)
Serum-free culture medium was used to dilute 10µM DCFH-DA at a 1:1000 ratio. And then, mouse skin tissues or human melanocytes were prepared into cell suspensions of 1–20×106 cells/mL using 10µM DCFH-DA. Cells were incubated at 37°C for 20 min. During this period, cells were shaken and mixed every 3–5 min. Following three washes with serum-free medium, intracellular ROS levels were quantified via flow cytometry, setting the excitation and emission wavelengths at 488nm and 525nm, respectively42,43.
Immunofluorescence measurement
FOXO3a (1:1000) primary antibody was incubated with 4-µm skin tissue sections or fixed HPEMs overnight at 4°C. And then, the specimens were treated with secondary antibodies labeled with Alexa Fluor fluorophores and counterstained with DAPI solution. Finally, the sections were observed and captured through fluorescence microscopy. For fluorescence imaging with ROS, a 4-µm frozen section of skin tissue or HPEMs slides were rewarmed at room temperature and dried. A circle was drawn around the tissue with a histochemical pen. The slides were treated with an autofluorescence quencher for 5 min and then rinsed under running water for 10 min. ROS staining solution was dropped and incubated in the dark at 37°C for 30 min. The sections underwent three 5-minute washes in PBS using a decolorization shaker. Then, DAPI staining solution was dropped and incubated for a duration of 10 min under dark conditions at room temperature. The slides were sealed with an anti-fluorescence quencher medium. The specimens were then observed, and images were collected via a fluorescence microscope. The excitation/emission profiles are 330–380/420 nm for DAPI and 510–560/590 nm for Cy3.
Western blot
For mouse skin tissue or human melanocytes, 50 mg of the skin tissue or 2 × 10⁵ cells and 1 mL of RIPA lysis buffer, enriched with protease inhibitors, were dispensed into a 1.5-mL microcentrifuge tube. After an ice bath for 30 min, a 5-min centrifugation was performed at 12,000 g to collect the supernatant fraction. After protein concentration was determined by the BCA method, the protein solution and 5× SDS loading buffer were mixed in a volume ratio of 4:1, and then boiled in a metal bath at 95 °C for 5 min. After the sample was subjected to 10% SDS-PAGE electrophoresis at 80 V or 120 V, proteins were electrotransferred onto a 0.22-µm PVDF membrane at a constant current of 200 mA for 1 h44,45. The membranes were then blocked at room temperature on a centrifuge shaker for 1 h using 5% skimmed milk (prepared with TBST buffer). The membranes were then exposed to primary antibodies specific to major histocompatibility complex class I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-Actin (1:1000), SOD (1:1000), CAT (1:1000), glutathione peroxidase 4 (GPX-4) (1:1000), and FOXO3a (1:1000) at 4 °C overnight. And the membranes were probed with the secondary antibody (1:10000) for 1 h at room temperature. ECL chemiluminescent reagent was employed to develop and capture images using ChemiScope 6100.
Quantitative reverse transcription-polymerase chain reaction (qRT-PCR)
Firstly, the sample RNA from mouse skin tissue or human melanocytes was obtained in accordance with the manufacturer’s instructions of the total RNA extraction kit. According to the operation instructions of the reverse transcription kit, the PCR instrument parameters were set as 25°C for 10 min, 42°C for 15 min, and 85°C for 5 min to obtain cDNA samples. Similarly, the parameters for setting up the PCR instrument were as follows to obtain sufficient DNA copy numbers: Pre-denaturation: 95°C for 5 min, 1 cycle; Denaturation: 95°C for 10 s, 40 cycles; Annealing and extension: 60°C for 30 s, 40 cycles. The normalized expression of the gene of interest is calculated using the following formula: 2‑ΔΔCq (ΔΔCq = Cqtarget‑Cqβ‑Actin)46,47. The information on the gene primer sequences for qRT-PCR is shown in Table 1.
ChIP-PCR analysis
ChIP-PCR analysis was carried out in accordance with the previous protocol48. First, the cells were cross-linked with 1% formaldehyde for 10 min, and glycine solution was added to terminate the cross-linking reaction. After washing with pre-cooled PBS containing PMSF, the cells were lysed with SDS lysis buffer containing PMSF. Subsequently, the chromatin DNA was sheared into fragments mainly ranging from 200 to 1,000 bp using an ultrasonic cell disruptor, and the fragment size was verified by agarose gel electrophoresis. The sheared chromatin samples were resuspended in ChIP dilution buffer containing PMSF, and 20µL of the sample was taken as the input control group. The remaining samples were pre-treated with Protein A+G Agarose/Salmon Sperm DNA. Then, 0.5µg of primary antibody was applied, followed by an overnight incubation at 4°C with slow shaking. The negative control group was treated with an equal amount of rabbit IgG. The next day, Protein A+G agarose beads were added to capture the antigen-antibody complexes, and the complexes were washed successively with low salt immune complex wash buffer, high salt immune complex wash buffer, LiCl immune complex wash buffer, and TE buffer. The immunoprecipitated complexes were eluted with elution buffer, and both the elution products and the samples in the input control group underwent a heat treatment of 65°C for 4h to break the cross-links. Subsequent to proteinase K-mediated protein digestion, DNA was isolated via phenol-chloroform extraction followed by ethanol precipitation. The purified DNA was dissolved in TE buffer and used for subsequent qRT-PCR analysis. And the gene sequence information for ChIP-PCR is shown in Table 2.
The candidate genomic sites for ChIP-PCR were selected through in silico prediction using the JASPAR database (https://jaspar.elixir.no/). Specifically, researchers retrieved the promoter sequences spanning 2000 bp upstream of the TSS of the CAT, SOD, and GPX4 genes. These sequences were scanned for FOXO3a binding motifs using the corresponding position weight matrix. To balance sensitivity and specificity, the authors set a relative profile score threshold of >80%. Among all predicted motifs meeting this criterion, the authors selected the top two highest-scoring putative sites for each gene as candidate regions for ChIP-PCR validation. For example, in the CAT gene, the selected sites were located at -733 bp and -1259 bp relative to the TSS. The anti-FOXO3a antibody used in this study is a commercially available ChIP-grade antibody. To ensure specificity, the authors applied two independent negative controls for every ChIP-PCR assay: isotype IgG and a negative genomic locus. The isotype IgG control was performed as parallel immunoprecipitations using non-immune IgG from the same species. For the negative genomic locus, the authors designed a specific primer pair targeting a non-binding region that lacks any predicted FOXO3a consensus motif. This control region allowed the authors to exclude enrichment due to random chromatin shearing or nonspecific PCR amplification. The fold enrichment was calculated using a three-step normalization strategy.
Step 1: Input normalized ΔCt, ΔCt [normalized IP] = Ct[IP]-(Ct[Input]-log₂(DF)) (1)
ΔCt [normalized IgG] = Ct[IgG] - (Ct[Input] - log₂(DF)). (2)
DF = Input Dilution Factor; in the experiment, DF = 10, as they used 10% input.
Step 2: ΔΔCt between IP and IgG:
ΔΔCt [IP/IgG] =ΔCt [normalized IP]-ΔCt [normalized IgG] (3)
Step 3: Fold enrichment = 2(-ΔΔCt [IP/IgG]). (4)
Statistical analysis
Data are expressed as mean ± standard deviation based on a minimum of three independent experiments. Statistical analyses were performed using GraphPad Prism software (version 6.0). Comparison of data among multiple groups following a normal distribution and homogeneity of variance was assessed using one-way analysis of variance (ANOVA), followed by Tukey’s post-test. Statistical significance was established at p < 0.05.
Résultats
AMG n'entraîne aucune toxicité hépatorénale chez les souris C3H/HeJ normales
Afin d'identifier clairement, d'un point de vue expérimental, la toxicité potentielle du AMG sur le foie et les reins, les chercheurs ont administré par gavage les trois doses (60, 90 et 120 mg/kg) précédemment étudiées chez des souris C3H/HeJ normales38. Comme indiqué dans Figure 1, après administration intragastrique d'AMG à trois doses pendant 21 jours, l'architecture des lobules hépatiques était bien définie, avec des hépatocytes disposés de manière ordonnée. Les tissus corticaux et médullaires du rein étaient normaux, et aucune lésion ni aucun dommage n'ont été observés au niveau des glomérules ou des tubules rénaux. Pendant la période d'administration d'AMG, aucune des souris n'a présenté de manifestations comportementales anormales. En effet, dans cet article, les données de toxicité biochimique et de variation du poids corporel n'ont pas été évaluées, ce qui pourrait affecter la pertinence de la conclusion selon laquelle l'AMG n'induirait aucune toxicité hépatique ou rénale. Toutefois, sur la base des résultats d'examen histopathologique du foie et du rein, ces données suggèrent partiellement que le traitement par AMG pour l'arthrite associée aux doses définies par les auteurs est raisonnable.
L'AMG inhibe l'apparition et le développement de l'acide arachidonique (AA) ainsi que la production d'espèces réactives de l'oxygène (ERO)
Premièrement, ils ont mesuré les indicateurs de CMH de classe I et d'IL-15 qui sont étroitement liés à l'apparition et à la progression d'AA. Comme indiqué dans Figure 2A–C, dans les conditions pathologiques de simulation de l'AA, la quantité de protéines CMH I et IL-15 dans les tissus cutanés de souris C3H/HeJ a augmenté significativement (p < 0,001). En revanche, les traitements avec AMG-M et AMG-H ont significativement diminué les niveaux d'expression de ces deux protéines (p < 0,01 ou p < 0.001). De même, les trois doses de traitement par AMG ont significativement réduit le taux d'IL-15 dans le sérum (p < 0.001, Figure 2D). En outre, les résultats d'immunofluorescence ont indiqué une forte quantité de ROS dans la peau des souris du groupe AA, tandis que l'intervention par AMG réduisait de manière significative l'expression des ROS par rapport au groupe AA (p < 0.001, Figure 2E et F). De façon cohérente, les résultats de cytométrie en flux ont montré que les niveaux de ROS dans les tissus cutanés du groupe AA étaient significativement élevés par rapport à le groupe témoin. Cependant, par rapport au groupe AA, l'intervention par AMG a inversé l'augmentation des ERO (p < 0.001, Figure 2G et H).
AMG a stimulé l'expression protéique et génique de FOXO3a
Afin d'étudier l'effet de l'AMG sur FOXO3a, les auteurs ont évalué son expression aux niveaux protéique et génétique. Les résultats d'immunofluorescence ont montré que le groupe AA présentait une réduction marquée de l'expression protéique de FOXO3a, tandis que l'AMG stimulait le niveau de la protéine FOXO3a dans le tissu cutané de souris C3H/HeJ.p < 0.001, Figure 3A et B). D'autres données de qRT-PCR indiquent que l'AMG augmente significativement l'expression du gène FOXO3a (p < 0.001; Figure 3C). De même, l'expérience de western blot a indiqué que AMG sensiblement accru l'expression protéique de FOXO3a (p < 0,05 ou p < 0.001, Figure 3D et E).
AMG a inhibé les événements de stress oxydatif dans les tissus cutanés de souris atteintes de AA
La progression pathologique de la AA induite par le stress oxydatif conduit à sa détérioration. Les résultats des tests biochimiques présentés dans la Figure 4 montrent que, par rapport au groupe témoin, les indicateurs antioxydants SOD, CAT et GPX-4 dans les tissus cutanés des souris du groupe AA étaient fortement inhibés (p < 0,001, Figure 4A et B), tandis que l'indicateur pro-oxydatif MDA augmentait considérablement (p < 0,001, Figure 4C). Comme prévu, les chercheurs ont constaté qu'après traitement par AMG, les indicateurs antioxydants augmentaient significativement, tandis que les indicateurs pro-oxydatifs diminuaient de manière significative (p < 0,001 ; Figure 4A–C). De même, les données de western blot suggèrent également qu'une intervention par AMG augmentait de façon significative les niveaux d'expression protéique des indicateurs antioxydants SOD, CAT et GPX-4 (p < 0,001 ; Figures 4D et 4E).
AMG a réduit l'apoptose et les événements inflammatoires des HPEM induits par le H2O2
Les résultats présentés dans la Figure 5A indiquent que des concentrations croissantes de H2O2 (200–1000 µM) altèrent progressivement la viabilité des HPEM (p < 0,001). Parmi celles-ci, une concentration de 600 µM de H2O2 s'est révélée la plus appropriée pour réduire la viabilité cellulaire des HPEM (p < 0,001). En outre, les auteurs ont constaté que, dans les conditions de stimulation des cellules HPEM par 600 µM de H2O2, une concentration d'AMG comprise entre 0,1 et 10 mg/mL pouvait augmenter significativement la viabilité cellulaire (p < 0,05 ou p < 0,001, Figure 5B). Conformément aux résultats des expériences animales, les auteurs ont également observé qu'AMG inhibait de manière significative l'apoptose induite par le H2O2 dans les HPEM, comme le montre l'analyse par cytométrie en flux destinée à la détection de l'apoptose dans les Figure 5C et D (p < 0,001). Concernant l'indicateur MHC I, une analyse par immunoblotting a en outre démontré qu'AMG supprimait de façon marquée l'expression protéique dans les HPEM soumises à une lésion induite par le H2O2 (p < 0,05 ou p < 0,01 ; Figures 5E et 5F). En ce qui concerne la détection des facteurs inflammatoires, les résultats de l'ELISA ont indiqué qu'AMG réduisait de manière significative l'abondance des cytokines pro-inflammatoires, notamment IFN-γ, IL-6 et IL-15, dans les HPEM induites par le H2O2 (p < 0,001 ; Figure 5G). De plus, l'inhibition de ces trois protéines pro-inflammatoires par AMG a été confirmée par analyse par immunoblotting, comme présenté dans les Figure 5H et I (p < 0,01 ou p < 0,001).
AMG a réduit les niveaux de ROS dans les HPEM induits par le H2O2
Par rapport aux cellules HPEM non traitées au H2O2 et à l'AMG, la stimulation par 600 µM de H2O2 a significativement favorisé la production de ROS, comme en témoignent les résultats des expériences d'immunofluorescence (p < 0,001, Figure 6A et B) et de cytométrie en flux (p < 0,001, Figure 6C et D), respectivement. Fait intéressant, l'AMG a significativement réduit la quantité de ROS (p < 0,001, Figure 6).
AMG a limité l'événement de stress oxydatif induit par H dans les HPEM2O2
De même, les auteurs ont évalué l'influence d'AMG sur le stress oxydatif induit par H dans les HPEM2O2. Par rapport au groupe témoin, H2O2 la stimulation a entraîné une diminution des fonctions de la SOD, de la CAT et de la GPX-4 (p < 0.001, Figure 7A et B), tout en augmentant significativement les niveaux de MDA (p < 0.001, Figure 7C). Étonnamment, l'intervention par AMG a significativement augmenté les activités de la SOD, de la CAT et de la GPX-4 (p < 0.001, Figure 7A et B), tout en réduisant le taux de MDA (p < 0.001, Figure 7C). D'autres résultats de western blot ont également confirmé que l'intervention par AMG augmentait significativement l'expression protéique de la SOD, de la CAT et de la GPX-4 (p < 0,05 ou p < 0.01, Figure 7D et E).
AMG a augmenté le niveau de FOXO3a ainsi que les protéines régulées par FOXO3a, SOD, CAT et GPX-4, dans les HPEM induites par le H2O2
Par rapport au groupe témoin, H2O2 la stimulation a entraîné une réduction marquée de l'expression du gène FOXO3a (p < 0.001, Figure 8A), alors que l'intervention par AMG a significativement atténué cet effet (p < 0.05, Figure 8A). Autre immunotransfert (Western blot) (p < 0.05, Figure 8B et C) et immunofluorescence (p < 0.05, Figure 8D et E) ont également confirmé que l'application d'AMG augmentait de manière significative l'expression protéique de FOXO3a. L'expérience de ChIP-PCR a confirmé que l'AMG peut augmenter les niveaux d'expression de la SOD (p < 0,001), CAT (p < 0,01) et GPX-4 (p < 0,01), comme illustré dans Figure 8F–I, ainsi que le niveau d'enrichissement de FOXO3a au niveau des promoteurs de SOD (p < 0,001), CAT (p < 0,001) et GPX-4 (p < 0.001) (Figure 8J–L).
AMG a réprimé le stress oxydatif et les phénomènes apoptotiques régulés par FOXO3a dans les HPEM induits par le H2O2
Dans un premier temps, les chercheurs ont établi une lignée d’HPEM présentant une faible expression de FOXO3a, caractérisée par une diminution importante de l’expression protéique (p < 0,001, Figure 9A et B) et génique (p < 0,001, Figure 9C) de FOXO3a. Les résultats de cytométrie en flux ont par ailleurs montré qu’en comparaison avec le groupe traité au H2O2, AMG réduisait de manière marquée les niveaux de ROS et l’apoptose cellulaire dans les HPEM à faible expression de FOXO3a (p < 0,001, Figure 9D–G). Parallèlement, AMG augmentait significativement l’expression protéique et génique de FOXO3a (p < 0,01, Figure 9H–J) ainsi que les niveaux d’expression des protéines SOD, CAT et GPX-4 régulées par FOXO3a (p < 0,05, p < 0,01 ou p < 0,001, Figure 9H, K–O) et de leurs gènes dans les HPEM à faible expression de FOXO3a.
DISPONIBILITÉ DES DONNÉES :
Toutes les données brutes sont disponibles dans le référentiel public suivant : https://doi.org/10.5281/zenodo.22090466.
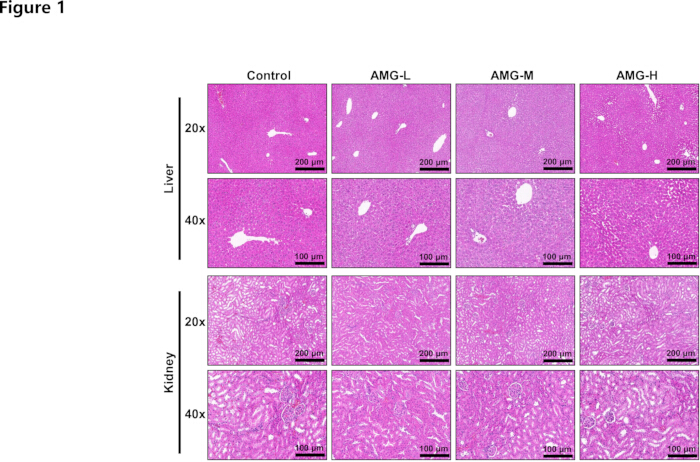
Figure 1 : Coloration HE. La coloration HE a été utilisée pour évaluer la toxicité dépendante de la dose de l'AMG (60, 90 et 120 mg/kg) sur le foie et les reins de souris C3H/HeJ normales. Aucun dommage pathologique spécifique au foie ou aux reins n’a été observé aux grossissements 20× (200 µm) et 40× (100 µm). n = 6. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
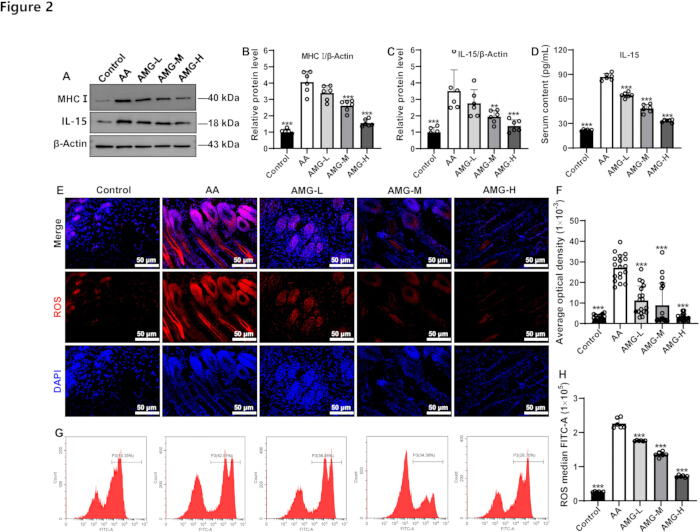
Figure 2: Effets de l'AMG sur la CMH I, l'IL-15 et les ERO dans les échantillons de peau de souris AA. (A–C), AMG a réduit les niveaux d'expression protéique de MHC I et d'IL-15, comme évalué par immunotransfert. (D), AMG a réduit Niveaux d'IL-15 dans le sérum des souris.E et F), AMG a réduit les niveaux de ROS dans des échantillons de peau de souris, comme détecté par le dosage en IF. (G et H), AMG a réduit les niveaux de ROS dans des échantillons de peau de souris, comme déterminé par cytométrie en flux. Les résultats expérimentaux sont présentés sous forme de moyenne ± SD. **p < 0,01 et ***p < 0,001 par rapport au groupe AA ; n = 6. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
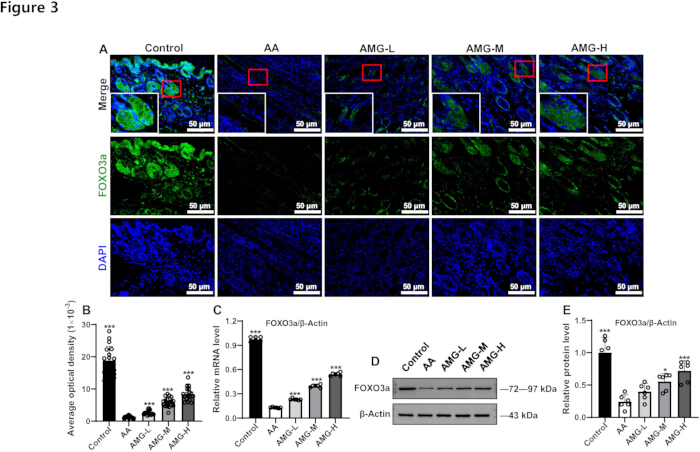
Figure 3 : Effets de l'AMG sur les niveaux protéiques et géniques de FOXO3a dans les échantillons de peau de souris AA. (A) L'AMG a augmenté les niveaux protéiques de FOXO3a, évalués par dosage en IF. (B) Résultats quantitatifs de l'IF. (C) L'AMG a augmenté l'expression génique de FOXO3a. (D) L'AMG a augmenté l'expression protéique de FOXO3a, détectée par immunobuvardage. (E) Résultats quantitatifs de l'immunobuvardage. Les résultats expérimentaux sont présentés sous forme de moyenne ± ÉT. *p < 0,05 et ***p < 0,001 par rapport au groupe AA ; n = 6. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
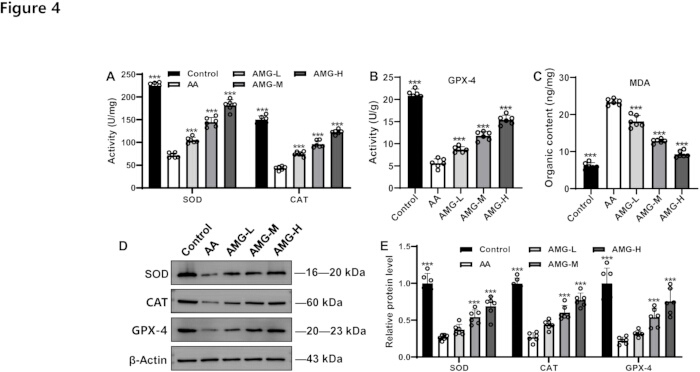
Figure 4 : Effets de l'AMG sur les indicateurs du stress oxydatif dans les échantillons de peau de souris AA. (A) L'AMG a stimulé les niveaux de SOD et de CAT, évalués à l'aide d'un kit de test biochimique. En (B) et (C), l'AMG a augmenté les niveaux de GPX-4 et réduit ceux de MDA. (D) Bandes protéiques représentatives de SOD, CAT et GPX-4. (E) Résultats quantitatifs de l'expression protéique de SOD, CAT et GPX-4. Les résultats expérimentaux sont présentés sous forme de moyenne ± ÉT. ***p < 0,001 par rapport au groupe AA ; n = 6. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
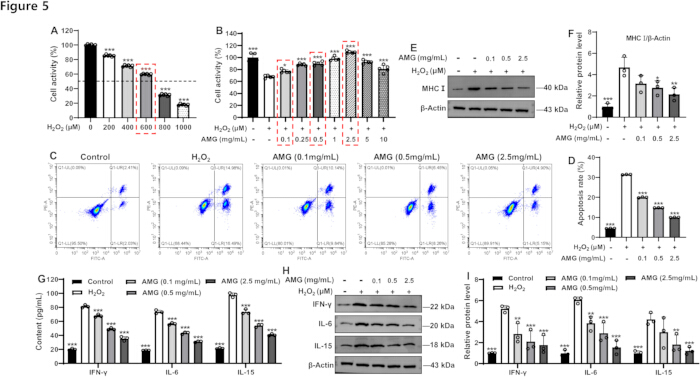
Figure 5 : Effets de l'AMG sur l'apoptose et les indicateurs inflammatoires des HPEM induits par le H2O2. (A) Conséquences de concentrations variables de H2O2 sur la viabilité des HPEM (n = 6). (B) Effets de concentrations variables d'AMG sur la survie des HPEM induits par une stimulation au H2O2 (n = 6). (C) Une analyse par cytométrie en flux a été utilisée pour évaluer l'apoptose induite par l'AMG dans les HPEM stimulés par le H2O2. (D) Résultats statistiques concernant l'apoptose cellulaire. (E) Bande de western blot de la molécule MHC I. (F) Résultat quantitatif de l'expression relative de la protéine MHC I. (G) Effets de l'AMG sur l'IFN-γ, l'IL-6 et l'IL-15 dans les HPEM induits par une stimulation au H2O2. (H) Bandes de western blot de l'IFN-γ, de l'IL-6 et de l'IL-15. (I) Résultat quantitatif du niveau relatif des protéines IFN-γ, IL-6 et IL-15. Les résultats expérimentaux sont présentés sous forme de moyenne ± écart-type. *p < 0,05, **p < 0,01 et ***p < 0,001 par rapport au groupe H2O2 ; n = 3. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
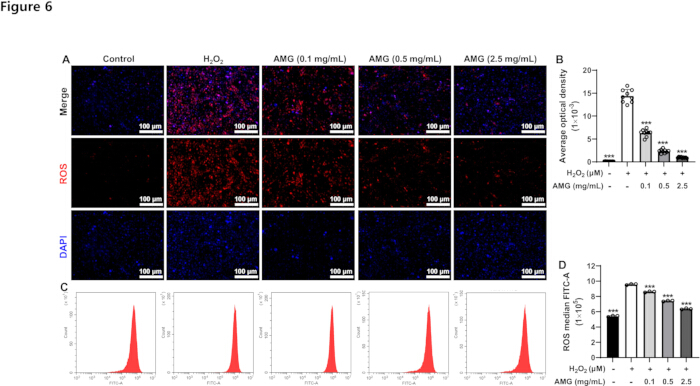
Figure 6 : Effets de l'AMG sur les ERO induites par le H2O2 dans les HPEM. (A) Image de fluorescence des ERO. (B) Résultats statistiques quantitatifs de la fluorescence des ERO. (C) Image de cytométrie en flux des ERO. (D) Résultats statistiques quantitatifs de la cytométrie en flux des ERO. Les résultats expérimentaux sont présentés sous forme de moyenne ± ÉT. ***p < 0,001 par rapport au groupe H2O2 ; n = 3. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
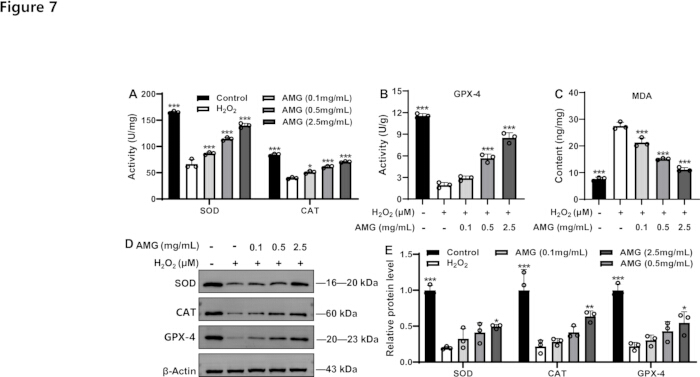
Figure 7 : Effets de l'AMG sur les indicateurs du stress oxydatif dans les HPEM induits par le H2O2. Les niveaux de SOD, de (A) CAT, de (B) GPX-4 et de (C) MDA dans les HPEM ont été mesurés à l'aide de kits biochimiques ou ELISA. Bandes de western blot de la SOD, de la CAT et du GPX-4 (D) et leurs résultats quantitatifs (E). Les résultats expérimentaux sont exprimés en moyenne ± DS. *p < 0,05, **p < 0,01 et ***p < 0,001 par rapport au groupe H2O2 ; n = 3. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
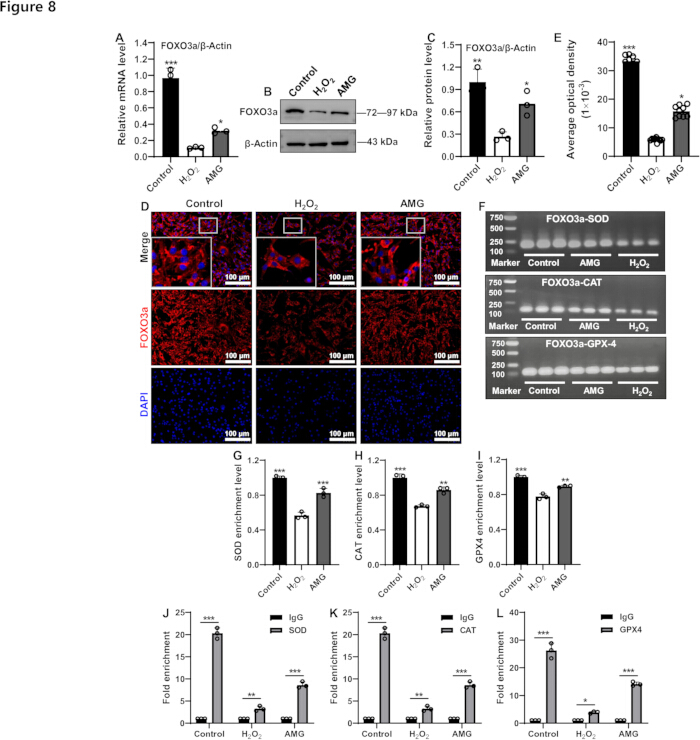
Figure 8 : Effets de l'AMG sur FOXO3a dans les HPEM induits par le H2O2. (A) niveau d'expression du gène FOXO3a. Bandes de western blot de FOXO3a (B) et leurs résultats quantitatifs (C). Image de fluorescence de FOXO3a (D) et résultats statistiques quantitatifs de la fluorescence (E). (F) profils électrophorétiques représentatifs de la PCR après immunoprécipitation de chromatine (ChIP-PCR) pour FOXO3a-SOD, FOXO3a-CAT et FOXO3a-GPX-4. Analyse quantitative des valeurs grises des bandes de ChIP-PCR pour SOD (G), CAT (H) et GPX-4 (I). Les niveaux d'enrichissement de FOXO3a aux promoteurs de SOD (J), CAT (K) et GPX-4 (L) ont été détectés par ChIP-PCR. Les résultats expérimentaux sont présentés sous forme de moyenne ± écart-type. *p < 0,05, **p < 0,01 et ***p < 0,001 par rapport au groupe H2O2, ou par rapport aux groupes indiqués ; n = 3. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
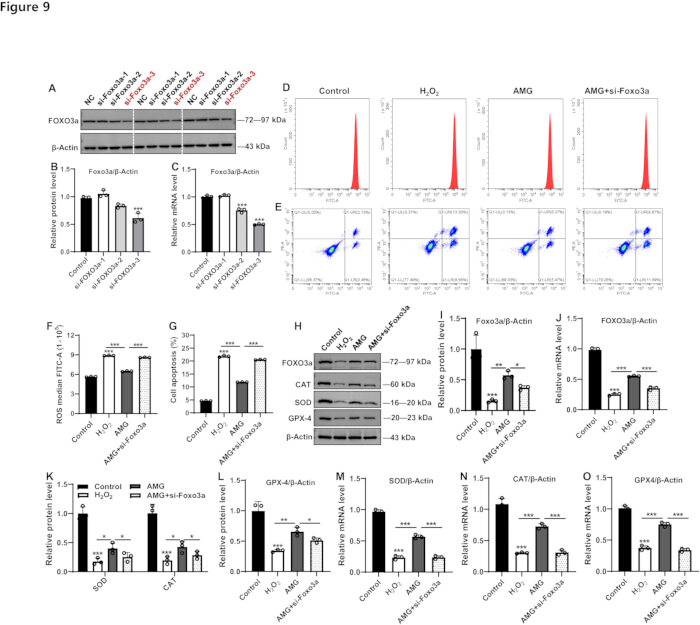
Figure 9 : Effets de l'AMG sur le stress oxydatif et l'apoptose dans les cellules HPEMs présentant une faible expression de FOXO3a et stimulées par H2O2. (A) Bandes de western blot de FOXO3a et leur résultat quantitatif (B). (C) Résultat quantitatif de l'expression de l'ARNm de FOXO3a. (D) Graphique de cytométrie en flux du ROS et de l'apoptose cellulaire (E). Et les résultats statistiques associés (F et G). (H) Bandes de western blot de FOXO3a, SOD, CAT et GPX-4. (I) Résultat quantitatif de l'expression protéique de FOXO3a. (J) Résultat quantitatif de l'expression de l'ARNm de FOXO3a. (K et L) Résultats quantitatifs de l'expression protéique de SOD, CAT et GPX-4. Résultats quantitatifs de l'expression génique de SOD (M), CAT (N) et GPX-4 (O). Les résultats expérimentaux sont présentés sous forme de moyenne ± écart-type. *p < 0,05, **p < 0,01 et ***p < 0,001 par rapport au groupe témoin ou par rapport aux groupes indiqués ; n = 3. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
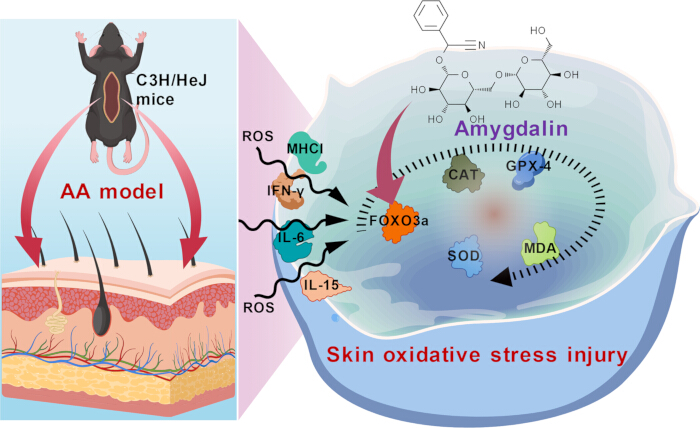
Figure 10 : Schéma du mécanisme. Ce schéma illustre le mécanisme par lequel l'AMG stimule l'expression de FOXO3a, inhibant ainsi le stress oxydatif et l'inflammation, et améliorant l'AA. Il a été créé par les auteurs à l'aide de BioGDP.com, et aucun problème de droit d'auteur n'est impliqué. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Gènes | Espèce | Séquences (5' - 3') | Longueur (pb) |
| FOXO3a | Souris | Sens : GCAAGCCGTGTACTGTGGA | 116 |
| Antisens : CGGGAGCGCGATGTTATCC | |||
| FOXO3a | Humain | Sens : CGGACAAACGGCTCACTCT | 150 |
| Antisens : GGACCCGCATGAATCGACTAT | |||
| SOD | Humain | Sens : AAAGATGGTGTGGCCGATGT | 167 |
| Antisens : CAAGCCAAACGACTTCCAGC | |||
| CAT | Humain | Sens : CTATCCTGACACTCACCGCC | 129 |
| Antisens : CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Humain | Sens : GCAAGGGCATCCTGGGAAAT | 84 |
| Antisens : GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | Humain | Sens : AATCTGGCACCACACCTTCTACAA | 172 |
| Antisens : GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | Souris | Sens : GTGCTATGTTGCTCTAGACTTCG | 174 |
| Antisens : ATGCCACAGGATTCCATACC |
Tableau 1 : Informations sur les séquences génétiques pour la qRT-PCR. Les amorces utilisées pour la qRT-PCR.
| Gènes | Espèce | Séquences (5' - 3') | Longueur (pb) |
| SOD | Humain | Sens : TGCCAGAAGAGGGACAGAACAGG | 173 |
| Antisens : ATCCGCCCACAGACACGAGAG | |||
| CAT | Humain | Sens : GGGAAGCAGATTTCTCCAGTG | 141 |
| Antisens : GGGTGTTGATTTCCTCCTTTACC | |||
| GPX-4 | Humain | Sens : TGGCACATTTTGGGGTTGGAAC | 103 |
| Antisens : TGAACGCTCCTCCTCCTTAAACG |
Tableau 2 : Informations sur les séquences génétiques pour la PCR après immunoprécipitation de la chromatine (ChIP-PCR). Les amorces utilisées pour la ChIP-PCR.
Discussion
L'AMG lui-même n'a pas de toxicité directe. Il est hydrolysé par les enzymes microbiennes intestinales ou par l'acide gastrique, produisant et libérant du cyanure d'hydrogène hautement toxique49. Le cyanure d'hydrogène est ensuite rapidement absorbé par le tube digestif dans la circulation sanguine et se répand dans les tissus corporels, provoquant une hypoxie dans les tissus du système nerveux, du système cardiovasculaire et du système respiratoire50. Sur le plan mécanistique, le cyanure d'hydrogène se combine aux ions fer du cytochrome oxydase, bloquant ainsi la chaîne respiratoire cellulaire, ce qui entraîne une hypoxie tissulaire et des troubles métaboliques cellulaires, et déclenche une intoxication aiguë51. Les symptômes toxiques comprennent des maux de tête, des nausées, des vomissements et des difficultés respiratoires49,52. Dans les cas graves, cela peut conduire à une insuffisance respiratoire et à la mort49,52. Par conséquent, garantir une plage de dosage sûre pour l'AMG constitue une condition préalable à l'étude de ses effets pharmacologiques. Dans cette étude, les auteurs ont d'abord confirmé par examen histopathologique que les doses utilisées (60, 90 et 120 mg/kg) n'entraînaient aucune toxicité hépatique ou rénale chez des souris C3H/HeJ normales, ce qui constitue la base pour des recherches ultérieures sur le traitement de l'alopécie areata par l'AMG.
L'IFN-γ joue un rôle moteur critique dans l'inflammation au cours du développement de l'AA, étant principalement sécrété par les lymphocytes T CD4+/CD8+ activés53,54,55. Il perturbe le privilège immunologique des follicules pileux (par exemple en inhibant la faible expression du CMH de classe I), incitant les lymphocytes T autoréactifs à attaquer les mélanocytes des follicules pileux, ce qui entraîne une vacuolisation des cellules mères du poil et une kératinisation anormale de la papille pileuse56,57. Des expériences animales ont montré que les souris dépourvues du gène de l'IFN-γ présentent une résistance à l'AA58. L'IL-6 et l'IL-15 peuvent renforcer les réponses immunitaires de type Th1 en activant la cascade de transduction du signal JAK/STAT et en favorisant la libération d'IFN-γ 59. De plus, l'IL-15 peut stimuler la prolifération des cellules NK et des lymphocytes T, aggravant l'infiltration inflammatoire autour des structures des follicules pileux60. Les papilles pileuses normales échappent à la surveillance immunitaire grâce à une faible expression du CMH de classe I, tandis que chez les patients atteints d'AA, le CMH de classe I est anormalement surexprimé, rendant les mélanocytes des follicules pileux cibles d'une attaque par les lymphocytes T61. Dans cette étude, les auteurs ont observé que le traitement par AMG réduisait significativement les niveaux des protéines CMH I et IL-15 dans la peau de souris C3H/HeJ. De précédentes expériences animales avaient également confirmé que l'AMG pouvait inhiber les niveaux d'IFN-γ et d'IL-6 chez les souris atteintes d'AA38. Dans le modèle de lésion des HPEMs induite par H2O2, l'expression du CMH de classe I ainsi que celle de cytokines pro-inflammatoires, notamment l'IFN-γ, l'IL-6 et l'IL-15, étaient fortement réduites après traitement par AMG. Ces données suggèrent que l'effet potentiel de l'AMG dans le traitement de l'AA pourrait être lié au maintien de l'équilibre entre immunité et inflammation.
Le déséquilibre entre le système enzymatique antioxydant (SOD, CAT et GPX-4) et les marqueurs de peroxydation lipidique MDA et ROS joue un rôle crucial dans la pathogenèse de l'AA62. La SOD réduit le stress oxydatif en catalysant la conversion de O2·⁻ en H2O2, tandis que la CAT et la GPX-4 décomposent davantage H2O2 en H2O, empêchant l'accumulation de ROS. Des preuves indiquent qu'un excès de ROS peut déclencher la peroxydation lipidique, entraînant une élévation des niveaux de MDA et endommageant directement les cellules du follicule pileux63. Chez les patients atteints de AA, la capacité d'élimination des ROS dans les follicules pileux diminue, et l'accumulation de MDA aggrave la mort apoptotique des cellules de la papille pileuse, provoquant une entrée prématurée des follicules pileux en phase de repos63. De plus, le stress oxydatif pourrait favoriser la libération du facteur pro-inflammatoire IFN-γ, aggravant ainsi l'attaque immunitaire et la dégénérescence du follicule pileux64. Dans cette étude, les chercheurs ont montré que l'intervention par AMG réduisait les ROS surexprimés dans la peau des souris atteintes d'AA et atténuait les lésions des cellules HPEM induites par H2O2. Par ailleurs, des investigations expérimentales in vivo et ex vivo ont toutes deux révélé que le traitement par AMG augmentait significativement les indicateurs antioxydants (SOD, CAT et GPX-4), tout en réduisant l'indicateur pro-oxydant MDA. Ces résultats indiquent que le maintien de l'équilibre du stress oxydatif constitue un mécanisme par lequel l'AMG contribue à lutter contre l'AA. Étant donné qu'une activité GPX-4 altérée pourrait entraîner une production incontrôlée de MDA, cela pourrait déclencher le processus de ferroptose. Ces processus moléculaires pourraient également contribuer à l'aggravation de l'AA et représenter un mécanisme thérapeutique potentiel de l'AMG. L'ensemble de ces hypothèses nécessite une vérification expérimentale supplémentaire à l'avenir.
En tant que facteur de transcription clé, FOXO3a pourrait être impliqué dans la pathogenèse de l'AA par l'intermédiaire des voies du stress oxydatif et de la régulation immunitaire.65Il peut transloquer vers le noyau en cas de stress oxydatif, induisant ainsi la surexpression d'enzymes antioxydantes clés telles que la SOD et la CAT, permettant l'élimination des espèces réactives de l'oxygène (ERO) en excès et réduisant les dommages oxydatifs au niveau du tissu du cuir chevelu. En atténuant la charge oxydative locale, FOXO3a peut stabiliser le privilège immunitaire des follicules pileux et limiter l'attaque auto-immune responsable de la chute de cheveux non cicatricielle. En ce qui concerne la régulation du stress oxydatif, l'activation de FOXO3a peut augmenter l'expression d'enzymes antioxydantes telles que la SOD et la CAT et inhiber l'accumulation des ERO.65Cependant, une fonction altérée de FOXO3a peut entraîner une production accrue de MDA, un produit clé de la peroxydation lipidique, exacerbant ainsi l'apoptose cellulaire 66. Au niveau de la régulation immunitaire, FOXO3a déclenche des attaques auto-immunes en régulant les antigènes restreints par le CMH de classe I67Cette étude a rapporté que l'AMG augmentait de manière spectaculaire les niveaux protéique et génique de FOXO3a dans le tissu cutané de souris C3H/HeJ ainsi que dans les cellules HPEM induites par le H2O2. De plus, l'AMG réduisait les niveaux de ROS et l'apoptose cellulaire, tout en augmentant l'expression de FOXO3a ainsi que les niveaux de SOD, CAT et GPX-4 régulés par FOXO3a dans les cellules HPEM présentant une faible expression de FOXO3a. Collectivement, ces résultats indiquent que l'effet thérapeutique de l'AMG sur l'AA est étroitement lié à l'équilibre régulatoire médié par FOXO3a entre le stress oxydatif et l'apoptose cellulaire. Compte tenu de la relation causale entre l'activation de FOXO3a par l'AMG et l'amélioration de l'AA, il sera nécessaire, dans de futures études, de réaliser une surexpression de FOXO3a ou une inhibition pharmacologique en présence de l'AMG. Par ailleurs, il reste à déterminer si FOXO3a activé par l'AMG peut atténuer le stress oxydatif et moduler les réponses inflammatoires afin de protéger les cellules souches du follicule pileux contre les dommages induits par les espèces réactives de l'oxygène (ROS) et contre la destruction immunitaire. Un autre point digne d'intérêt concerne la possibilité que l'AMG exerce son effet antioxydant en contrecarrant directement la toxicité de H₂O₂ ou en régulant la transduction du signal intracellulaire, reste une question non résolue dans ce domaine de recherche.
En conclusion, cette étude a tout d'abord confirmé qu'AMG n'était pas potentiellement toxique pour le foie et les reins aux doses testées. De plus, il a été démontré au niveau moléculaire qu'AMG pourrait favoriser l'expression de FOXO3a, activant ainsi de façon transcriptionnelle les expressions de SOD, CAT et GPX-4, et inhibant les réponses inflammatoires ainsi que les événements apoptotiques pour traiter l'AA (Figure 10). Toutefois, certaines limites existantes dans cette étude doivent encore être explorées et clarifiées dans des recherches ultérieures. Premièrement, la clarification de la toxicité à long terme et des propriétés pharmacocinétiques d'AMG chez des animaux atteints d'AA constitue la base et la condition préalable à une recherche approfondie sur ses effets pharmacologiques et ses mécanismes moléculaires. Deuxièmement, les effets pharmacologiques d'AMG dans le traitement de l'AA nécessitent encore d'être confirmés par des études à grande échelle menées sur plusieurs modèles animaux et par des essais cliniques. En ce qui concerne le mécanisme moléculaire, il reste nécessaire de réaliser des expériences de sauvetage afin de confirmer davantage si c'est bien FOXO3a qui médie l'effet pharmacologique d'AMG. Il convient également d'explorer davantage s'il s'agit de l'activité antioxydante directe d'AMG ou de l'effet antioxydant exercé par FOXO3a médié par AMG.
Déclarations de divulgation
Les auteurs n'ont aucune incompatibilité d'intérêts à déclarer.
CONTRIBUTION DES AUTEURS :
Xun He : Investigation, méthodologie, rédaction – projet original. Jingsong Liu, Jiawei Wang et Zhe Dai : gestion des données. Yugang Gong, Wei Lu et Xiaowei Sha : logiciels, visualisation et validation. Xun He : conceptualisation, rédaction – relecture & ; Édition, acquisition de financement et supervision.
Remerciements
Ce travail a été soutenu par le Comité de santé des cadres de la province du Sichuan (2024-221).
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| 5×MasterMix tout-en-un (avec kit de suppression d'ADN génomique AccuRT) | Applied Biological Materials Inc., Jiangsu, Chine | G492 | |
| Anticorps anti-β-actine | Affinity Biosciences Co., Ltd., Wuhan, Chine | AF7018 | |
| Amygdaline | Chengdu Herbpurify Co., Ltd., Chengdu, Chine | K-001-181216 | |
| Anticorps catalase | Proteintech, Wuhan, Chine | 66765-1-Ig | |
| Kit catalase | Elabscience, Wuhan, Chine | E-BC-K031-M | |
| Souris C3H/HeJ | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, Chine | N000190 | |
| Kit d'analyse ChIP | Beyotime Biotechnology, Shanghai, Chine | P2078 | |
| Milieu de culture 254 | Gibco, Thermo Fisher Scientific, Amérique | M-254-500 | |
| Réactif de coloration DAPI | Servicebio, Wuhan, Chine | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., Shanghai, Chine | S25046 | |
| EvaGreen Express 2×qPCR MasterMix - sans colorant | Applied Biological Materials Inc., Jiangsu, Chine | MasterMix-ES | |
| Noir rapide HB | Sangon Biotech Co., Ltd., Shanghai, Chine | A602008-0025 | |
| Sérum de veau fœtal | Every Green | 13011-8611 | |
| Microscope à fluorescence | SOPTOP | CX40 | |
| Anticorps FOXO3a | Proteintech, Wuhan, Chine | 10849-1-AP | |
| Microtome cryostat | Thermo | Cryotome E | |
| Anticorps glutathion peroxydase 4 | Proteintech, Wuhan, Chine | 67763-1-Ig | |
| Kit glutathion peroxydase 4 | Elabscience, Wuhan, Chine | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, États-Unis | —— | |
| Pommade à l'imiquimod | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, Chine | H20030129 | |
| Anticorps interféron gamma | Proteintech, Wuhan, Chine | 15365-1-AP | |
| Kit interféron gamma | Elabscience, Wuhan, Chine | E-EL-H0108 et E-EL-M0048 | |
| Anticorps interleukine 6 | Proteintech, Wuhan, Chine | 21865-1-AP | |
| Kit interleukine 6 | Elabscience, Wuhan, Chine | E-EL-H6156 et E-EL-M0044 | |
| Anticorps interleukine 15 | Affinity Biosciences Ltd., Wuhan, Chine | DF2521 | |
| Kit interleukine 15 | Elabscience, Wuhan, Chine | E-EL-H0222 et E-EL-M0728 | |
| Kit malondialdéhyde | Elabscience, Wuhan, Chine | E-EL-0060 | |
| Anticorps CMH | Affinity Biosciences Ltd., Wuhan, Chine | DF8558 | |
| Microscope optique | ZEISS | Primo Star | |
| Microtome à paraffine | Thermo scientific | HM325 | |
| Logiciel de numérisation histopathologique | 3DHISTECH (Hongrie) | Slide Viewer2.5.0 | |
| Solution pénicilline-synthroïde | Biosharp, Pékin, Chine | BL505A | |
| IgG de lapin | Beyotime Biotechnology, Shanghai, Chine | A7016 | |
| Kit d'analyse des ERO | Beyotime Biotechnology, Shanghai, Chine | S0033M | |
| Anticorps superoxyde dismutase 1 | Proteintech, Wuhan, Chine | 10269-1-AP | |
| Embarreuse de tissus | Wuhan Junjie Electronics Co., Ltd., Wuhan, Chine | JB-P5 | |
| Hydroextracteur de tissus | Thermo scientific | STP420 ES | |
| Kit d'isolement d'ARN total | Foregene, Chengdu, Chine | RE-03014 | |
| Kit superoxyde dismutase totale | Elabscience, Wuhan, Chine | E-BC-K020-M | |
| Vaseline blanche | Shanghai Aladdin Biochemical Technology Co., Ltd., Shanghai, Chine | P434227 |
Références
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.