L'électroacupuncture atténue l'insuffisance cardiaque chronique et le remodelage cardiaque pathologique en restaurant l'activité neuronale au sein du noyau du faisceau solitaire. Cette neuromodulation centrale thérapeutique est associée à la surexpression du facteur de transcription YY1, cible biologique candidat.
Article de recherche
Mécanismes centraux de l'électroacupuncture dans l'insuffisance cardiaque chronique : enseignements de la protéomique quantitative du noyau du tractus solitaire
* These authors contributed equally
Dans cet article
Résumé
Résumé
L'insuffisance cardiaque chronique (ICC) est une cause majeure de mortalité cardiovasculaire dans le monde, provoquée par une dysrégulation autonome et une hyperactivation du système sympathique. Bien que l'électroacupuncture (EA) exerce des effets cardioprotecteurs par neuromodulation centrale, ses cibles moléculaires spécifiques au sein du noyau du faisceau solitaire (NFS), une région clé d'intégration autonome, restent mal définies. Pour étudier ce mécanisme, un modèle de rat souffrant d'ICC a été établi par ligature de l'artère coronaire antérieure descendante. Les rats ont reçu une EA aux points d'acupuncture HT7 bilatéraux pendant sept jours consécutifs. La fonction cardiaque et les lésions myocardiques ont été évaluées par échocardiographie, dosages immunoenzymatiques (ELISA) et colorations histologiques. L'activité neuronale du NFS a été analysée par immunofluorescence de la protéine c-Fos et par électrophysiologie in vivo. Les mécanismes moléculaires ont été explorés à l'aide de protéomique quantitative et de bioinformatique, les cibles principales étant validées par PCR quantitative et immunoblotting. L'EA a amélioré la fraction d'éjection du ventricule gauche, atténué la fibrose myocardique et réduit les marqueurs sériques de l'insuffisance cardiaque. Parallèlement, l'EA a restauré les fréquences spontanées de décharge neuronale, l'énergie des potentiels de champ locaux et l'expression de c-Fos dans le NFS. Le profilage protéomique a identifié 85 protéines différentiellement exprimées modulées par l'EA. La stratification fonctionnelle des 58 protéines régulées à la baisse et des 27 protéines régulées à la hausse a révélé leur implication respective dans l'organisation de la matrice extracellulaire et le remodelage chromatinien dépendant de l'ATP. L'approche de criblage progressif, combinant la cartographie topologique des réseaux, l'enrichissement en voies biologiques et le profilage d'expression tissulaire, a permis d'identifier le facteur de transcription YY1 comme une cible candidate fortement sensible. La validation in vivo a confirmé que l'EA régulait positivement l'expression de YY1. Dans l'ensemble, l'EA a atténué le remodelage cardiaque pathologique et restauré l'activité neuronale du NFS. YY1 a été identifié comme une cible candidate associée à cette neuromodulation centrale, apportant ainsi une compréhension moléculaire des mécanismes sous-jacents aux effets de l'EA dans l'ICC.
Introduction
L'insuffisance cardiaque chronique (ICC) est largement reconnue comme la phase terminale de diverses pathologies cardiovasculaires et demeure une cause majeure de mortalité cardiovasculaire dans le monde, imposant un fardeau considérable aux systèmes de santé mondiaux1. La progression physiopathologique de l'ICC est principalement due à une dysrégulation du système nerveux autonome, caractérisée par une hyperactivation sympathique prolongée et un retrait parasympathique2. La restauration de l'homéostasie autonome est donc considérée comme une stratégie thérapeutique essentielle pour atténuer le remodelage cardiaque pathologique et améliorer la fonction cardiaque globale3.
L'électroacupuncture (EA) représente un perfectionnement moderne de l'acupuncture traditionnelle et a acquis une reconnaissance internationale pour son efficacité clinique dans la prise en charge des affections cardiovasculaires4. De nombreuses recherches, notamment nos études antérieures, ont montré que cette thérapie exerce des effets cardioprotecteurs importants principalement en modulant le système nerveux autonome central. Plus précisément, nous avons démontré que l'EA au point d'acupuncture Shenmen (HT7) peut efficacement supprimer l'activité sympathique excessive et rétablir l'équilibre sympathovagalin par des mécanismes neuronaux centraux ciblés, atténuant ainsi la progression pathologique de l'insuffisance cardiaque chronique5,6,7,8.
Le noyau du faisceau solitaire (NFS), situé dans la moelle oblongue, est un centre d'intégration essentiel au maintien de l'équilibre autonome central. Il agit comme la station de relais principale pour les réflexes cardiovasculaires et les entrées sensorielles périphériques, régulant l'équilibre dynamique entre le tonus sympathique et vagal9. Malgré son importance anatomique et fonctionnelle, les modifications moléculaires spécifiques au sein de ce centre critique du tronc cérébral durant le traitement par électroacupuncture (EA) de l'insuffisance cardiaque chronique (CHF) restent largement inconnues. La protéomique à haut débit avancée, combinée à une analyse bioinformatique, offre un outil puissant pour cartographier de manière impartiale les réseaux protéiques complexes et les cascades de signalisation impliqués dans ce processus neurobiologique central10.
Par conséquent, cette étude visait à examiner les effets de l'électroacupuncture (EA) au point d'acupuncture HT7 sur la fonction cardiaque et l'activité neuronale du noyau tractus solitaires (NTS) dans l'insuffisance cardiaque chronique (CHF), ainsi qu'à caractériser les modifications moléculaires au sein du NTS associées au traitement par EA. En combinant l'électrophysiologie in vivo, la protéomique quantitative, l'analyse bioinformatique et la validation moléculaire, cette étude cherchait à identifier des cibles moléculaires candidates associées à la neuromodulation centrale induite par l'EA dans l'insuffisance cardiaque chronique.
Protocole
Toutes les méthodes impliquant des animaux vertébrés ont été réalisées conformément aux directives du comité de soins aux animaux et d'utilisation de l'Université de médecine chinoise d'Anhui, sous le numéro d'approbation AHUCM-rats-2024145. Les réactifs et l'équipement utilisés sont listés dans le Tableau des matériaux.
Préparation et regroupement des animaux
Des rats mâles Sprague-Dawley de qualité sanitaire, âgés de 8 semaines et pesant entre 200 et 250 g, ont été utilisés pour toutes les expériences. Les animaux ont été logés dans un environnement contrôlé maintenu à 24 ± 2 °C et à une humidité relative de 50 %–60 %, sous un cycle lumineux standard de 12 h clair/obscur. Tous les rats ont eu accès libre à la nourriture et à l'eau et ont subi une période d'acclimatation d'une semaine avant toute procédure expérimentale.
Pour l'expérience I, qui a évalué l'activité fonctionnelle et neuronale centrale, 24 rats ont été répartis aléatoirement en quatre groupes de six animaux chacun : groupes Sham, CHF, EA et Sham EA (Figure 1A). Pour l'expérience II, qui a évalué les cibles moléculaires et la protéomique à haut débit, 36 rats ont été répartis aléatoirement en trois groupes de 12 chacun : Sham, CHF et EA. Les tailles d'échantillons ont été déterminées selon la méthode de l'équation des ressources afin de respecter l'éthique du bien-être animal et le principe de réduction, tout en assurant une validité statistique (E = 20 pour l'expérience I ; E = 33 pour l'expérience II)11. Cette stratégie de taille d'échantillon était conforme aux protocoles utilisés dans des études antérieures sur l'EA dans les maladies cardiovasculaires8,12. Des analyses de puissance a posteriori ont indiqué qu'une puissance statistique supérieure à 0,90 soutenait l'adéquation de cette répartition. Le groupe Sham EA a été exclu de l'expérience II car des évaluations fonctionnelles préliminaires ont montré une absence d'efficacité thérapeutique.
Mise en place du modèle d'insuffisance cardiaque chronique
Les rats ont été privés de nourriture pendant 12 h avant la chirurgie et ont eu un accès libre à l'eau. L'anesthésie a été induite avec 3 % d'isoflurane et maintenue à 1,5 %–2 % d'isoflurane pendant l'intervention. Étant donné qu'il s'agit d'un anesthésique volatil, un système d'aspiration adéquat a été utilisé, et l'intervention a été réalisée dans un endroit bien ventilé afin de prévenir toute exposition professionnelle.
Des électrocardiogrammes (ECG) des membres standard ont été enregistrés en continu. Une thoracotomie gauche a été réalisée pour exposer le cœur, et l'artère coronaire descendante antérieure gauche (LAD) a été ligaturée de façon permanente à 2 à 3 mm sous l'appendice auriculaire gauche à l'aide d'un fil non résorbable 7-013. L'ischémie réussie a été confirmée par l'identification d'un relèvement du segment ST d'au moins 0,2 mV sur l'ECG (Figure 1B). Des injections intrapéritonéales de pénicilline (200 000 U/mL) et des injections sous-cutanées de carprofène (5 mg/kg) ont été administrées quotidiennement pendant trois jours consécutifs après l'opération afin de prévenir l'infection et d'atténuer la douleur.
Pour le groupe témoin « sham », une intervention de thoracotomie identique a été réalisée, suivie d'une insertion superficielle d'aiguille au niveau du site anatomique correspondant, sans ligature de l'artère coronaire antérieure descendante (LAD). Des soins postopératoires et une surveillance identiques ont été assurés. Une évaluation échocardiographique a été effectuée 4 semaines après la chirurgie. Le modèle était considéré comme correctement établi lorsque la fraction d'éjection du ventricule gauche (LVEF) était ≤45 %8 (Figure 1C). Les animaux qui ne répondaient pas à ces critères, présentaient des anomalies électrocardiographiques basales préopératoires ou une mortalité prématurée étaient systématiquement exclus. Des rats supplémentaires ont subi des protocoles chirurgicaux identiques afin de remplacer immédiatement les animaux exclus et de maintenir une taille d'échantillon uniforme.
Intervention par électroacupuncture
Conformément aux protocoles anatomiques comparatifs établis14, les points d'acupuncture HT7 bilatéraux situés sur le méridien du Cœur de la Main-Shaoyin ont été localisés sur la face palmaire du pli transversal du poignet, près de la bordure ulnaire, directement dans l'affaissement radial du tendon du muscle fléchisseur ulnaire du carpe. La zone locale a été désinfectée de routine. Deux aiguilles à acupuncture stériles et jetables (0,25 x 25 mm) ont été introduites perpendiculairement dans chaque région du point HT7 jusqu'à une profondeur cible de 2 à 3 mm, en les positionnant à environ 1 mm l'une de l'autre afin de rester strictement dans la même région du point d'acupuncture. Pour la documentation vidéo, la profondeur d'insertion a été vérifiée visuellement en marquant préalablement la tige de l'aiguille à la position 3 mm avant l'insertion.
Une aiguille a été reliée au terminal cathodique de l'appareil d'EA, et l'aiguille adjacente a été reliée au terminal anodique afin d'établir un circuit électrique localisé (Figure 1D). Une onde électrique continue a été délivrée à une fréquence constante de 2 Hz et à une intensité de 1 mA, calibrée pour produire des contractions musculaires visibles mais légères dans les membres correspondants, pendant 30 minutes par jour sur sept jours consécutifs sous anesthésie à l'isoflurane.
Un protocole minimal de piqûres aiguës a été appliqué au groupe témoin afin de tenir compte des réponses somatosensorielles non spécifiques15,16. Des aiguilles stériles ont été insérées superficiellement à une profondeur de 0,5–1 mm aux mêmes emplacements HT7, sans brancher de fils électriques ni appliquer de courant, en respectant une durée d'anesthésie de 30 min. Les groupes témoins de base, Sham et CHF, ont subi une exposition quotidienne identique à l'isoflurane (1,5 %–2 % d'isoflurane pendant 30 min par jour sur sept jours consécutifs), sans insertion d'aiguille ni stimulation électrique. Cette procédure a permis d'uniformiser la base anesthésique pour tous les groupes expérimentaux et de contrôler d'éventuels artefacts neurosuppresseurs ou cardioprotecteurs induits par une anesthésie volatile répétée.
Évaluation par échocardiographie et euthanasie des animaux
Après l'intervention, les rats ont été anesthésiés avec 3 % d'isoflurane pour l'induction et 1 % pour le maintien, puis fixés en position supine sur la plateforme pour animal. Les poils du thorax ont été soigneusement retirés à l'aide d'un agent dépilatoire, et un agent de couplage acoustique a été appliqué uniformément sur la peau exposée. La fonction cardiaque a été évaluée à l'aide d'un système d'échographie numérique équipé d'un transducteur écho de 18 MHz. Une échocardiographie en mode M a été enregistrée pour mesurer la FEVG et la fraction de raccourcissement du ventricule gauche (FRVG), et la valeur moyenne obtenue à partir de 3 réplicats techniques a été calculée pour l'analyse finale.
Le sang a été prélevé de l'aorte abdominale tandis que les animaux étaient encore sous anesthésie afin d'éviter toute perte de sang ultérieure et toute coagulation, et de garantir la qualité des échantillons pour le dosage immunoenzymatique (ELISA). Les rats ont été euthanasiés immédiatement par induction continue avec 5 % d'isoflurane jusqu'à l'arrêt cardiaque et respiratoire.
Les échantillons de tissus ont ensuite été répartis selon le plan expérimental. Pour l'expérience I, 3 rats par groupe ont été utilisés pour prélever le cœur destiné à la coloration par hématoxyline-éosine (HE) et à la coloration de Masson, ainsi que le cerveau destiné à l'immunofluorescence de c-Fos. Les trois rats restants ont été affectés à l'électrophysiologie in vivo. Pour l'expérience II, des tissus du NTS bilatéral ont été extraits de six rats par groupe pour la protéomique. Les tissus des six rats restants ont été récoltés pour la vérification moléculaire : trois ont été utilisés pour le Western blot et la qPCR, et trois ont été utilisés exclusivement pour la qPCR.
Dosage immuno-enzymatique
Les échantillons de sang recueillis ont été laissés à coaguler naturellement à 4 °C pendant 10 à 20 min. Les échantillons ont été centrifugés à 1 000 x g pendant 15 min à 4 °C afin de séparer le sérum, et les surnageants ont été récupérés. Lorsque l'analyse n'était pas effectuée immédiatement, les échantillons de sérum ont été conservés à −80 °C jusqu'à leur utilisation. Les concentrations sériques de peptide natriurétique cérébral pro-NT (NT-proBNP) et de troponine T cardiaque (cTnT) ont été quantifiées à l'aide de kits ELISA spécifiques, conformément aux instructions standard. Les valeurs d'absorbance ont été mesurées, et les niveaux de biomarqueurs ont été calculés à partir de courbes standards.
Coloration histologique et immunofluorescence
Les tissus cardiaques récoltés ont été rincés dans une solution de chlorure de sodium à 0,9 % prérefroidie, sectionnés à 5 mm au-dessus de l'apex, puis inclus en paraffine. Les coupes tissulaires ont été déparaffinisées et réhydratées. La coloration par l'hématoxyline-éosine a été réalisée en appliquant l'hématoxyline pendant 10 min, suivie d'une contre-coloration à l'éosine pendant 2,5 min. La coloration de Masson a été effectuée en appliquant l'hématoxyline pendant 60 s puis la trichromie de Masson pendant 30 à 60 s. Les coupes ont été différenciées dans de l'acide phosphorique à 6 %–8 % et contre-colorées au vert clair pendant 5 min. La fraction volumique du collagène (CVF) a été quantifiée afin d'évaluer la fibrose myocardique.
Les tissus cérébraux récoltés ont été fixés dans du paraformaldéhyde à 4 %, déshydratés dans des solutions de saccharose à concentration croissante et sectionnés à une épaisseur de 30 µm. Étant donné que le paraformaldéhyde est toxique et suspecté d'être cancérigène, il a été manipulé sous une hotte chimique tout en portant des équipements de protection individuelle adaptés. Les sections ont été bloquées avec un tampon contenant 0,5 % de Triton X-100 et 3 % d'albumine de sérum bovin, puis incubées toute la nuit à 4 °C avec un anticorps primaire dirigé contre c-Fos. Les sections ont ensuite été lavées avec du chlorure de sodium tamponné au phosphate et incubées avec les anticorps secondaires correspondants pendant 2 h à température ambiante à l'abri de la lumière. Les coupes ont été montées avec une solution antifade contenant de la 4',6-diamidino-2-phénylindole (DAPI), et les neurones positifs pour c-Fos ont été observés en microscopie.
Électrophysiologie in vivo
Les rats ont été anesthésiés à l'isoflurane à 3 % pour l'induction et à 1 % pour le maintien, puis fixés dans un appareil stéréotaxique pour cerveau. Le cuir chevelu a été rasé et désinfecté. Une incision médiane a été réalisée pour exposer le bregma, et la dure-mère a été retirée. Un trou crânien a été percé avec précision au-dessus de la région du NTS selon les coordonnées stéréotaxiques suivantes par rapport au bregma : antéro-postérieur (AP) ±12,6 mm, médio-latéral (ML) ±0,9–2,1 mm, et dorso-ventral (DV) ±7,6–8,1 mm.
Après l'achèvement des enregistrements électrophysiologiques, la localisation stéréotaxique exacte de l'extrémité de l'électrode a été vérifiée. Un courant continu de 1 mA a été appliqué brièvement à l'électrode d'enregistrement pendant 10 s afin de créer une petite lésion électrolytique. Après l'expérience, le tronc cérébral a été sectionné et le trajet de la lésion a été confirmé histologiquement comme étant localisé anatomiquement au sein du NTS.
Une matrice de microélectrodes à huit canaux (2 x 4) a été implantée et lentement avancée jusqu'à la région cérébrale cible à une vitesse de 5 µm/s à l'aide d'un micromanipulateur motorisé. Une fois l'activité neuronale stabilisée, les enregistrements ont été acquis en continu pendant 400 s. Un système d'acquisition multicanal a été utilisé pour capturer les décharges de potentiels d'action neuronales (filtrées entre 150 et 8 000 Hz, fréquence d'échantillonnage de 40 kHz) et les potentiels de champ locaux (PCL ; filtrés entre 0,7 et 400 Hz, fréquence d'échantillonnage de 1 kHz).
Un logiciel de tri des pics a été utilisé pour éliminer les signaux d'interférence et les artefacts typiques de grande amplitude par corrélation croisée des formes d'onde. L'analyse ultérieure des signaux neuronaux a été réalisée à l'aide d'un logiciel d'analyse neuronale. Les neurones ont été classés comme actifs uniquement s'ils présentaient une fréquence moyenne de décharge spontanée >2 Hz et maintenaient un rapport signal/bruit stable >3:1. Le seuil de 2 Hz a été choisi en fonction des caractéristiques physiologiques établies des neurones du noyau du faisceau solitaire (NTS) liés au système autonome ; il permettait d'exclure efficacement les cellules principalement silencieuses ainsi que les salves rythmiques respiratoires à basse fréquence, garantissant ainsi que l'analyse se concentre sur les neurones activement toniques impliqués dans la régulation cardiovasculaire basale17,18,19,20. La fréquence moyenne de décharge neuronale et les diagrammes en raster des potentiels d'action ont été générés selon ces critères. Des spectrogrammes énergétiques des potentiels locaux de champ (LFP) en 2D et des topographies tridimensionnelles de la densité spectrale de puissance (PSD) ont été construits afin d'évaluer les caractéristiques énergétiques des oscillations neuronales.
Après l'enregistrement, l'incision a été suturée et les rats ont été surveillés jusqu'à leur réveil complet de l'anesthésie. La pénicilline a été administrée par injection intrapéritonéale, et le carprofène (5 mg/kg, s.c.) a été administré quotidiennement pendant trois jours consécutifs.
Analyse protéomique quantitative par acquisition indépendante des données
Les protéines totales ont été extraites à l'aide d'un tampon de lyse et quantifiées par la méthode à l'acide bichinchoninique. Les protéines ont été dénaturées, soumises à une alkylation réductrice, puis digérées par la trypsine à 37 °C pendant 2 h. Les peptides obtenus ont été désalinisés à l'aide d'une colonne C18, concentrés à 45 °C, puis resuspendus pour une analyse ultérieure par spectrométrie de masse.
Les peptides ont été chargés sur une colonne de piégeage (C18, 5 µm, 300 µm x 5 mm) équilibrée avec 96 % de tampon A (acide formique 0,1 % dans l'eau). Les peptides ont été séparés le long d'une colonne analytique de chromatographie liquide à très haute performance à haut débit en utilisant un gradient rigoureusement optimisé de tampon A et de tampon B (acide formique 0,1 % dans 80 % d'acétonitrile).
La spectrométrie de masse a été réalisée en mode d'acquisition indépendante des données (DIA) en ions positifs avec une tension d'électrospray de 1,9 kV. Les balayages complets du spectromètre de masse ont été obtenus sur une plage de masse de 380 à 980 m/z avec une résolution de 240 000, un objectif de contrôle automatique du gain (AGC) de 500 % et un temps d'injection maximal de 3 ms. Les spectres MS/MS ont été acquis avec une résolution de 80 000 (objectif AGC : 500 % ; temps d'injection maximal : 3 ms ; amplitude du lens RF : 40 %). Les ions précurseurs ont été fragmentés par dissociation collisionnelle à haute énergie, avec une fenêtre d'isolement de 2 Th et une énergie de collision normalisée de 25 %, dans un temps de cycle défini de 0,6 s.
Les données brutes de spectrométrie de masse ont été traitées à l'aide du logiciel DIA-NN. Une bibliothèque spectrale a été générée en utilisant l'algorithme interne d'apprentissage profond, et la fonction d'appariement entre les analyses a été appliquée pour la quantification par rapport à la base de données du protéome de référence de Rattus norvegicus, avec une digestion par la trypsine et jusqu'à 2 clivages manqués autorisés. La matrice quantitative finale des protéines a été filtrée en utilisant un seuil strict de taux de faux positifs de 1 % au niveau des ions précurseurs et au niveau des protéines.
Analyse bioinformatique et recherche de gènes centraux
Les analyses bioinformatiques et les visualisations de données ont été principalement réalisées à l'aide de l'environnement de programmation R, ainsi que de logiciels spécialisés en visualisation de réseaux. Afin d'assurer la transparence méthodologique et la reproductibilité, tous les scripts R personnalisés utilisés au cours de ces processus analytiques ont été fournis dans le fichier supplémentaire 1. Le contrôle de qualité initial des données et l'évaluation de la distribution globale ont été effectués à l'aide du package ropls. Des statistiques descriptives concernant l'identification et la quantification des protéines ont été compilées ; une analyse discriminante par moindres carrés partiels (PLS-DA) a été réalisée entre les trois groupes ; une analyse discriminante par moindres carrés partiels orthogonaux (OPLS-DA) a été effectuée pour les comparaisons par paires ; et des cartes thermiques de corrélation des échantillons ont été générées à l'aide du package pheatmap.
Les protéines exprimées de manière différentielle ont été sélectionnées à l'aide de seuils comprenant une valeur p <0,05, un changement d'expression >1,2 et un score d'importance variable dans la projection >1,0. Les diagrammes en double volcan ont été générés à l'aide du package ggplot2, les intersections ont été identifiées à l'aide du package ggVennDiagram, et les cartes thermiques de regroupement hiérarchique ont été tracées à l'aide du package pheatmap afin de visualiser les protéines communes. Des analyses d'enrichissement en Gene Ontology (GO) et dans l'Encyclopédie de Kyoto des gènes et des génomes (KEGG) ont été réalisées séparément pour les protéines surexprimées et sous-exprimées à l'aide du package enrichR, basé sur la base de données Enrichr.
Toutes les protéines exprimées de manière différentielle ont été cartographiées dans la base de données STRING avec un seuil de confiance de 0,4 afin de construire le réseau d'interactions protéine-protéine. Les données d'interaction ont été importées dans un logiciel de visualisation de réseaux. Le plugin cytoHubba a été utilisé pour calculer les scores topologiques, et les 18 gènes ayant les scores les plus élevés ont été extraits en fonction de l'intensité de la couleur des nœuds. Les 18 candidats centraux ont fait l'objet d'une analyse d'enrichissement de voies, et les 10 protéines les plus marquantes ont été sélectionnées pour évaluer leurs niveaux d'expression dans différents tissus humains à l'aide de la base de données Genotype-Tissue Expression (GTEx). Le gène central le plus important a été identifié en fonction des niveaux d'expression dans le cerveau humain et des scores topologiques du réseau. Le navigateur de données Cistrome a été utilisé pour prédire les facteurs de transcription en aval et les modifications d'histones associées au gène central spécifique.
Immunotransfert et réaction de polymérase en chaîne quantitative
Des protéines totales ont été extraites de tissus du SNT à l'aide d'un mélange de lyse contenant un tampon de lyse au fluorure de phénylméthylsulfonyle, du PMSF et des inhibiteurs de phosphatase. Les échantillons ont été homogénéisés à l'aide d'un disrupteur cellulaire par ultrasons et centrifugés à 13 800 x g pendant 20 min à 4 °C afin de récupérer les surnageants. Les concentrations en protéines ont été déterminées à l'aide d'un kit de dosage des protéines par l'acide bicinechoninique. Un total de 20 µg de protéines provenant de chaque échantillon a été séparé par électrophorèse sur gel de polyacrylamide en présence de dodécylsulfate de sodium à 10 %, puis transféré sur des membranes de fluorure de polyvinylidène.
Les membranes ont été bloquées avec du lait écrémé à 5 % dans du Tween Tris-buffered saline (TBST) pendant 1 h à température ambiante, puis incubées toute la nuit à 4 °C avec des anticorps primaires spécifiques ciblant Yin Yang 1 (YY1) et la β-actine, utilisée comme protéine de référence. Les membranes ont été lavées trois fois pendant 5 min avec du TBST, puis incubées avec un anticorps secondaire conjugué à la peroxydase de raifort pendant 1,5 h à température ambiante. Les bandes cibles ont été visualisées à l’aide d’un kit de chimiluminescence amplifiée, capturées à l’aide d’un système d’imagerie et quantifiées par rapport à la β-actine.
L'ARN total a été extrait de tissus NTS à l'aide d'un réactif d'extraction d'ARN. La concentration et la pureté de l'ARN ont été mesurées à l'aide d'un spectrophotomètre, et l'ADN complémentaire de premier brin a été synthétisé à l'aide d'un kit de transcription inverse. Une réaction de polymérisation en chaîne quantitative en temps réel (PCR) a été réalisée à l'aide d'un kit de PCR SYBR Green sur un système de PCR en temps réel. Les séquences spécifiques d'amorces utilisées pour l'amplification, ainsi que leurs numéros d'accès respectifs à la base de données NCBI Reference Sequence, étaient les suivantes : YY1 (NM_001002271.1), sens 5'-AGCGTTCGTTGAGAGCTCAA-3' et antisens 5'-AGCCTTCGAATGTGCACTGA-3' ; DPF2 (NM_001014264.1), sens 5'-TGTGATGACTGTGACCGTGG-3' et antisens 5'-TCCAAACACAGGTGGCAACT-3' ; DMAP1 (NM_001007705.1), sens 5'-GGTGTGACATTACGGAGCCA-3' et antisens 5'-TCCAGCAGCATCTGTTCCAG-3' ; et la glycéraldéhyde-3-phosphate déshydrogénase (GAPDH) (NM_017008.4), sens 5'-GGCACAGTCAAGGCTGAGAATG-3' et antisens 5'-ATGGTGGTGAAGACGCCAGTA-3'. Les niveaux d'expression relative des ARNm ont été calculés selon la méthode 2-ΔΔCt et normalisés par rapport au gène de référence interne GAPDH.
Analyse statistique
Toutes les données expérimentales ont été analysées à l'aide d'un logiciel statistique et sont présentées sous la forme de la moyenne ± l'écart type (SD). La normalité a été évaluée à l'aide du test de Shapiro-Wilk, et l'homogénéité des variances a été vérifiée par le biais du test de Brown-Forsythe.
Pour les comparaisons entre deux groupes indépendants, le test t de Student ou le test t apparié a été utilisé pour les données satisfaisant aux critères de normalité. Les données ne satisfaisant pas aux hypothèses de normalité ont été analysées à l'aide du test U de Mann-Whitney ou du test de Wilcoxon pour échantillons appariés. Pour les comparaisons entre plusieurs groupes, une analyse de variance à un facteur, suivie du test a posteriori de Holm-Sidak, a été utilisée lorsque les hypothèses de normalité et d'homogénéité étaient satisfaites. Le test H de Kruskal-Wallis, suivi du test a posteriori de Dunn, a été utilisé lorsque ces hypothèses n'étaient pas satisfaites.
Les corrélations ont été évaluées à l'aide du coefficient de corrélation de Pearson calculé à l'aide du package Hmisc dans R. Les p-valeurs correspondantes ont été ajustées selon la méthode de taux de fausses découvertes de Benjamini-Hochberg via le package stats afin de contrôler l'augmentation du risque d'erreur de type I due aux tests multiples. Le seuil de significativité statistique générale a été fixé à p <0,05.
Résultats
L'électroacupuncture améliore la fonction cardiaque et atténue les lésions myocardiques chez les rats souffrant d'insuffisance cardiaque chronique
Pour évaluer les effets de l'EA sur l'IC, un modèle rat a été établi par ligature de l'artère coronaire antérieure descendante (LAD), suivie d'interventions spécifiques d'EA ou d'EA Sham. Des évaluations systématiques, incluant l'échocardiographie, des dosages biochimiques et des colorations histologiques, ont été réalisées (Figure 2A). Sur le plan fonctionnel, le groupe IC présentait une dilatation ventriculaire et une altération de la contractilité. Le traitement par EA a atténué les réductions du VESG et du VSSG observées chez les rats souffrant d'IC, tandis que le groupe EA Sham présentait des niveaux de fonction cardiaque comparables à ceux du groupe IC (Figure 2B et Figure 2C).
En outre, l'EA a réduit les taux sériques de NT-proBNP et de cTnT, indiquant une diminution de la charge cardiaque et une atténuation des lésions myocardiques. En revanche, le groupe EA Sham a présenté des paramètres biochimiques similaires à ceux du groupe IC (Figure 2E,F). L'analyse histologique a montré que le groupe IC présentait des lésions structurales myocardiques et une fibrose. Le traitement par EA a amélioré l'architecture myocardique et réduit la FVC, tandis que le groupe EA Sham conservait des modifications pathologiques et des taux de FVC comparables à ceux du groupe IC (Figure 2D). Dans l'ensemble, l'EA a exercé des effets cardioprotecteurs contre l'IC, alors que l'intervention EA Sham n'a pas produit d'effets thérapeutiques similaires.
L'électroacupuncture active les neurones du noyau du faisceau solitaire chez des rats présentant une insuffisance cardiaque chronique
Pour déterminer si le SNT médie la réponse centrale au traitement par EA, l'activation neuronale a été évaluée par marquage de la protéine c-Fos, un marqueur de l'excitation neuronale. L'imagerie en immunofluorescence (Figure 3A) et le comptage quantitatif des cellules (Figure 3B) ont révélé que le nombre de neurones positifs pour c-Fos dans le SNT était inférieur dans le groupe IC sévère par rapport au groupe faux opéré. Toutefois, le traitement par EA a augmenté l'expression de c-Fos à des niveaux comparables à la valeur de base du groupe faux opéré. Parallèlement aux résultats fonctionnels périphériques, le groupe faux traitement par EA a présenté des niveaux d'expression de c-Fos similaires à ceux du groupe IC sévère.
Afin d'évaluer l'état fonctionnel de ces neurones du SNT, des signaux électrophysiologiques in vivo ont été enregistrés. Les tracés de décharge des potentiels d'action (Figure 3C) et la fréquence moyenne de décharge quantitative (Figure 3D) étaient conformes aux résultats histologiques. La fréquence de décharge spontanée des neurones du SNT était réduite dans les conditions d'ICG. En revanche, l'intervention par EA augmentait la fréquence de décharge neuronale, tandis que la procédure d'EA factice ne provoquait aucun changement électrophysiologique de ce type.
Ce modèle d'activation neuronale a été confirmé par l'analyse du potentiel de champ local. Comme illustré dans les spectrogrammes colorés 2D du PCL et les cartes tridimensionnelles de densité spectrale de puissance (Figure 3E), l'énergie oscillatoire neuronale au sein du SNT a été atténuée durant l'état d'IC. Après le traitement par EA, une augmentation de l'intensité de puissance a été observée sur l'ensemble du spectre de fréquences neuronales, indiquant une activation du réseau, laquelle était absente dans le groupe témoin EA factice.
Afin d'examiner la pertinence physiologique de cette activation centrale, une analyse de corrélation de Pearson a été réalisée, intégrant des paramètres cardiaques périphériques à l'activité neuronale centrale du noyau du faisceau solitaire (NTS) (Figure 3F). L'analyse a montré que la fréquence moyenne de décharge et l'expression de c-Fos au sein du NTS étaient positivement corrélées avec la fraction d'éjection du ventricule gauche (LVEF). En revanche, ces indicateurs d'activité neuronale centrale présentaient une corrélation négative avec le marqueur sérique de l'insuffisance cardiaque NT-proBNP. Ces corrélations indiquent que l'activation neuronale du NTS modulée par l'EA est liée à son efficacité cardioprotectrice périphérique.
L'électroacupuncture modifie le profil protéomique global dans le noyau du faisceau solitaire
En raison du manque d'efficacité thérapeutique observé dans le groupe EA Sham lors des évaluations fonctionnelles précédentes, la phase protéomique a inclus uniquement les groupes Sham, CHF et EA. Avant la collecte des tissus, 12 rats par groupe ont subi une évaluation échocardiographique afin d'évaluer les effets thérapeutiques de l'EA, et ces résultats sont présentés dans la figure supplémentaire 1A. Suite à cette évaluation, 6 réplicats biologiques de chaque groupe ont été soumis à une analyse protéomique quantitative basée sur la spectrométrie de masse.
Des contrôles de qualité et des analyses multivariées ont été réalisés afin d'évaluer la fiabilité et la distribution globale des données protéomiques. Le nombre total de protéines identifiées était de 5 914 dans le groupe Sham, de 5 980 dans le groupe CHF et de 5 836 dans le groupe EA, indiquant une détection comparable des protéines entre les trois groupes expérimentaux (Figure 4A et Tableau supplémentaire 1). Une analyse discriminante par moindres carrés partiels a mis en évidence une séparation nette entre les groupes Sham, CHF et EA, indiquant des profils protéomiques globaux distincts associés à l'état pathologique et à l'intervention EA (Figure 4B).
L'analyse discriminante par moindres carrés partiels orthogonaux par paires a de nouveau mis en évidence une séparation entre les groupes Sham et CHF (Figure 4C) ainsi qu'entre les groupes CHF et EA (Figure 4D). Les tests de permutation correspondants ont confirmé la fiabilité des modèles respectifs. De plus, la carte thermique des corrélations de Pearson a révélé des corrélations élevées au sein de chaque groupe et des profils distincts entre les groupes parmi les échantillons protéomiques, ce qui soutient la reproductibilité des réplicats biologiques (Figure 4E). Collectivement, ces analyses de contrôle qualité et multivariées indiquent que le jeu de données protéomiques était suffisamment robuste pour permettre l'identification ultérieure et l'analyse bioinformatique des protéines différentiellement exprimées.
L'électroacupuncture module les protéines différentiellement exprimées et les voies de signalisation centrales dans le noyau du faisceau solitaire
Afin d'explorer les cibles moléculaires de l'EA, les modifications des protéines ont été analysées. Les diagrammes en volcan ont montré la répartition des protéines surexprimées et sous-exprimées dans les comparaisons Sham versus CHF et CHF versus EA (Figure 5A, Tableau supplémentaire 2 et Tableau supplémentaire 3). Afin d'identifier les cibles thérapeutiques, une analyse d'intersection a été réalisée. Comme illustré par les diagrammes de Venn, 58 protéines surexprimées dans le groupe CHF mais sous-exprimées après le traitement par EA ont été identifiées, ainsi que 27 protéines sous-exprimées dans le groupe CHF et surexprimées suite à l'intervention par EA (Figure 5B et Tableau supplémentaire 4). Ce criblage a permis d'obtenir un total de 85 protéines différentiellement exprimées centrales. La carte thermique de regroupement hiérarchique a démontré que l'intervention par EA modulait les profils d'expression anormaux de ces 85 protéines, en les rapprochant du niveau de référence Sham (Figure 5C).
Afin de déterminer les fonctions biologiques de ces cibles principales, des analyses d'enrichissement GO et KEGG ont été réalisées séparément pour les deux sous-ensembles de protéines distincts. Pour le sous-ensemble des 58 protéines régulées à la baisse par l'EA, le graphique en bulles GO a montré un enrichissement significatif dans des processus biologiques tels que l'organisation de la matrice extracellulaire et l'organisation de la structure extracellulaire, ainsi que dans des composants cellulaires tels que la structure encapsulante externe et le trimère de collagène, et des fonctions moléculaires telles que la liaison au collagène et la liaison au récepteur du glutamate (Figure 5D et Tableau supplémentaire 5). L'analyse ultérieure des voies KEGG, visualisée à l'aide de diagrammes en cordes et de diagrammes de Sankey, a révélé que ces 58 protéines participent à des cascades incluant la digestion et l'absorption des protéines, le cytosquelette des cellules musculaires et la voie de signalisation TGF-β (Figure 5E et Tableau supplémentaire 6). Ces visualisations topologiques ont mis en évidence des protéines spécifiques, notamment COL3A1, COL14A1, MYH11, DCN et DPF2, en tant que nœuds importants reliant plusieurs voies pathologiques.
Inversement, une annotation fonctionnelle a été réalisée pour le sous-ensemble de 27 protéines surexprimées suite à l'intervention EA. L'analyse d'enrichissement en termes de GO a indiqué leur implication dans des processus biologiques tels que la régulation de la croissance cellulaire et la régulation positive de l'élongation de la transcription à partir d'un brin matrice d'ADN, ainsi que dans des fonctions moléculaires incluant la liaison aux protéines dépendante du calcium et la liaison aux tétrapyrroles (Figure 5F et Tableau supplémentaire 7). Les diagrammes en cordes et de Sankey de KEGG correspondants ont attribué ces protéines à des voies essentielles, notamment le remodelage de la chromatine dépendant de l'ATP et le complexe répresseur polycomb (Figure 5G et Tableau supplémentaire 8). Notamment, cette cartographie de réseau a isolé des protéines clés telles que YY1, E2F2 et ENTPD5, assurant ainsi un lien entre ces réseaux de signalisation centraux. Cette stratification fonctionnelle complète a établi la base structurelle nécessaire à la validation ultérieure des cibles principales.
La topologie du réseau et le profilage d'expression identifient YY1 comme une cible candidate associée aux effets de l'intervention par électroacupuncture
Afin de déterminer le gène central parmi les 85 protéines exprimées de manière différentielle, un réseau d'interactions protéine-protéine a été construit. L'analyse topologique a identifié 18 nœuds présentant des scores de connectivité élevés (Figure 6A et Tableau supplémentaire 9). Ensuite, une analyse des voies KEGG a été réalisée spécifiquement pour ces 18 protéines centrales. Les diagrammes circulaires et de Sankey correspondants ont mis en évidence les relations complexes entre ces protéines centrales et les cascades de signalisation enrichies, notamment le remodelage de la chromatine dépendant de l'ATP, le complexe répresseur polycomb et la voie de signalisation TGF-β (Figure 6A et Tableau supplémentaire 10). Sur la base de ce profil fonctionnel, les 10 protéines les plus fortement enrichies ont été sélectionnées pour un criblage supplémentaire. Étant donné que la cible thérapeutique de l'EA se situe dans le système nerveux central, ces 10 candidats ont été évalués à l'aide de la base de données d'expression tissulaire humaine GTEx (Figure 6B et Figure supplémentaire 1B–J). Les résultats ont indiqué que seules YY1 (Figure 6B), DMAP1 (Figure supplémentaire 1C) et DPF2 (Figure supplémentaire 1D) étaient exprimées dans les tissus cérébraux.
Afin d'isoler la cible candidate hautement sensible à l'EA, des expériences moléculaires in vivo utilisant des tissus du SNT ont été réalisées. Une PCR quantitative en temps réel a été utilisée pour évaluer la sensibilité transcriptionnelle des trois candidats enrichis dans le cerveau. L'expression des ARNm de YY1 était réduite dans les conditions d'IC et augmentée après le traitement par EA, tandis que les niveaux d'expression des ARNm de DPF2 et DMAP1 ne présentaient aucune variation statistiquement significative entre les groupes expérimentaux (Figure 6C). Ce criblage transcriptionnel a exclu DPF2 et DMAP1 d'une validation ultérieure et a désigné YY1 comme le principal candidat sensible. Une analyse ultérieure par immunobuvardage a montré que les niveaux protéiques de YY1 étaient réduits dans le groupe IC par rapport au témoin faux opéré, alors que l'intervention par EA inversait cette tendance, augmentant l'expression protéique de YY1 (Figure 6D et Figure 6E). Ces résultats expérimentaux indiquent que l'EA régule positivement l'expression de YY1 au sein du SNT.
Afin d'étudier les mécanismes régulateurs en amont contrôlant l'expression de YY1, des analyses ont été menées sur les modifications histones associées et les facteurs de transcription concernés. Il est important de noter que ces résultats reposent exclusivement sur des prédictions bioinformatiques computationnelles issues du Cistrome Data Browser et ne représentent pas une validation expérimentale directe par ChIP-séq. La prédiction épigénétique a mis en évidence des modifications des histones, notamment H3K27ac, H3K27me3 et H3K4me3, présentant de hauts scores de potentiel régulateur au niveau du locus YY1 (Figure 6F). Parallèlement, le score de potentiel régulateur a identifié des facteurs de transcription tels que CDK9, PRDM1 et ELL2 comme régulateurs en amont de YY1 (Figure 6G). Ces prédictions bioinformatiques décrivent les réseaux épigénétiques et transcriptionnels potentiels contrôlant l'expression de YY1 dans le SNT.
En résumé, les données présentées démontrent que l'intervention par électroacupuncture améliore efficacement la fonction cardiaque systémique et atténue les lésions myocardiques chez les rats souffrant d'insuffisance cardiaque chronique. Ces effets cardioprotecteurs périphériques s'accompagnent de façon centrale par la restauration de l'activité de décharge neuronale et de l'énergie oscillatoire neuronale au sein du noyau du faisceau solitaire. De plus, un criblage protéomique quantitatif a identifié 85 protéines différentiellement exprimées clés et mis en évidence le facteur de transcription YY1 comme un candidat cible particulièrement sensible. Dans leur ensemble, ces résultats suggèrent que l'efficacité thérapeutique de l'électroacupuncture contre l'insuffisance cardiaque chronique est étroitement associée à la restauration de la fonction neuronale du noyau du faisceau solitaire et que la surexpression de YY1 pourrait être impliquée dans ce processus neurobiologique central.
Disponibilité des données
Toutes les données générées et analysées pour étayer les résultats de cette étude sont incluses dans le manuscrit et son fichier supplémentaire 1. Afin de respecter l'exigence d'accessibilité publique des données, toutes les données brutes disponibles à l'appui de cette recherche ont été déposées dans le référentiel public Zenodo et sont librement accessibles via le lien suivant : https://doi.org/10.5281/zenodo.22030720. Des données complémentaires sont disponibles auprès des auteurs correspondants sur demande raisonnable.
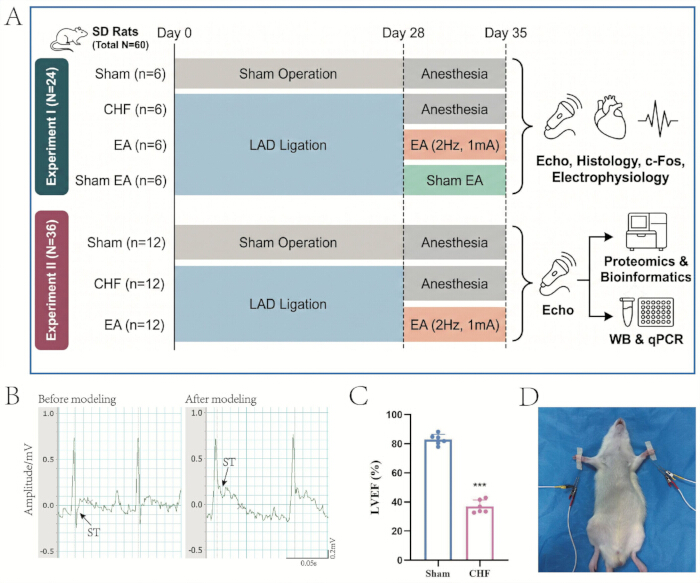
Figure 1 : Schéma expérimental, mise en place du modèle de rat atteint d'insuffisance cardiaque chronique et intervention par électroacupuncture. (A) Schéma général de l'expérience, incluant la chronologie et la répartition en groupes pour les deux séries expérimentales indépendantes. (B) Enregistrements représentatifs d'électrocardiogrammes avant et après la ligature de l'artère coronaire antéro-descendante (LAD), les flèches indiquant l'élévation du segment ST confirmant l'ischémie myocardique. (C) Analyse quantitative de la FEVG quatre semaines après la chirurgie, afin de confirmer la réussite de la modélisation (réplicats biologiques n = 6, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham. (D) Intervention par électroacupuncture aux points d'acupuncture HT7 bilatéraux. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
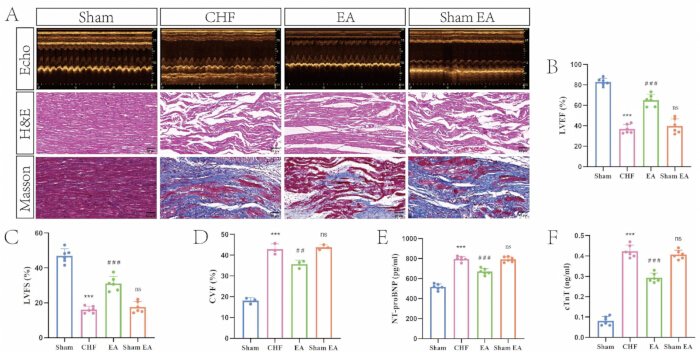
Figure 2 : L'électroacupuncture améliore la fonction cardiaque et atténue les lésions myocardiques chez des rats présentant une insuffisance cardiaque chronique. (A) Échocardiogrammes représentatifs en mode M accompagnés d'images de colorations par l'hématoxyline-éosine et la trichrome de Masson des tissus myocardiques provenant des quatre groupes expérimentaux (barre d'échelle = 50 µm). (B) Analyse quantitative de la FEVG entre les groupes (réplicats biologiques n = 6, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. (C) Analyse quantitative de la FSVD entre les groupes (réplicats biologiques n = 6, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. (D) Analyse quantitative de la FVC entre les groupes (réplicats biologiques n = 3, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; ##p < 0,01 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. (E) Analyse quantitative des taux sériques de NT-proBNP entre les groupes (réplicats biologiques n = 6, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. (F) Analyse quantitative des taux sériques de cTnT entre les groupes (réplicats biologiques n = 6, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
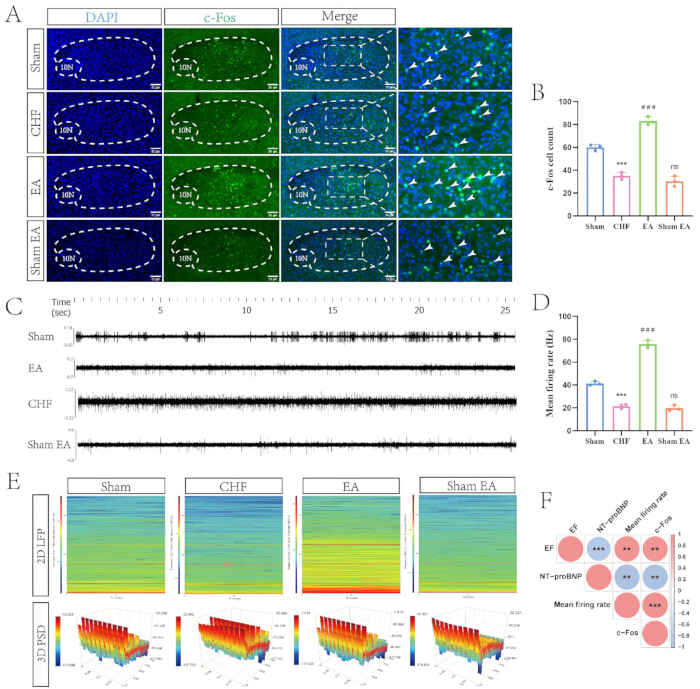
Figure 3 : L'électroacupuncture restaure l'activité neuronale dans le noyau du faisceau solitaire chez des rats présentant une insuffisance cardiaque chronique. (A) Images représentatives d'immunofluorescence de l'expression de c-Fos dans le NTS selon les différents groupes. Les noyaux sont contre-colorés avec le DAPI, et les cellules positives pour c-Fos sont colorées en vert. Les lignes en pointillés délimitent la région anatomique, et les flèches blanches indiquent des neurones représentatifs positifs pour c-Fos (barre d'échelle = 30 µm). (B) Analyse quantitative du nombre de cellules positives pour c-Fos selon les groupes (réplicats biologiques n = 3, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. (C) Traces représentatives in vivo de décharges électrophysiologiques de potentiels d'action dans le NTS selon les groupes. (D) Analyse quantitative de la fréquence moyenne de décharge neuronale selon les groupes (réplicats biologiques n = 3, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. (E) Spectrogrammes locaux représentatifs en 2D et topographies tridimensionnelles de densité spectrale de puissance illustrant l'énergie oscillatoire neuronale au sein du NTS. (F) Matrice de corrélation évaluant les relations entre les phénotypes cardiovasculaires périphériques et les paramètres d'activité neuronale centrale. Les cercles rouges et bleus indiquent respectivement des corrélations positives et négatives. **p < 0,01 ; ***p < 0,001. Veuillez cliquer ici pour consulter une version agrandie de cette figure.
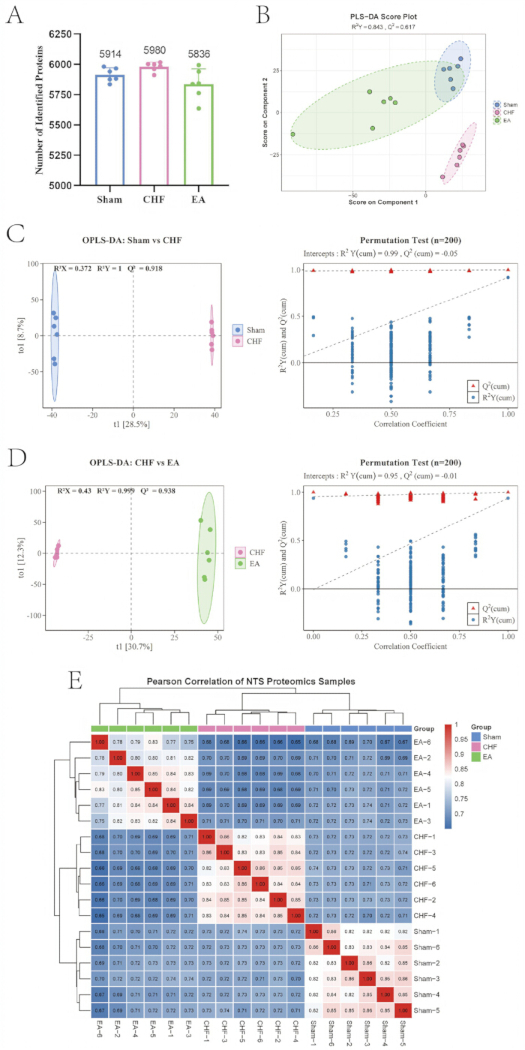
Figure 4 : Contrôle qualité et évaluation statistique multivariée des profils protéomiques dans le noyau du faisceau solitaire. (A) Aperçu quantitatif des protéines identifiées dans les trois groupes expérimentaux (réplicats biologiques n = 6). (B) Graphique des scores de l'analyse discriminante des moindres carrés partiels illustrant la distribution spatiale globale et la séparation entre les groupes. (C) Graphique des scores de l'analyse discriminante des moindres carrés partiels orthogonaux et le test de permutation correspondant validant la fiabilité du modèle pour la comparaison Sham versus CHF (200 permutations). (D) Graphique des scores de l'analyse discriminante des moindres carrés partiels orthogonaux et le test de permutation correspondant validant la fiabilité du modèle pour la comparaison CHF versus EA (200 permutations). (E) Carte thermique de regroupement hiérarchique des coefficients de corrélation de Pearson évaluant la reproductibilité intra-groupe et la variance inter-groupes pour tous les échantillons protéomiques. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
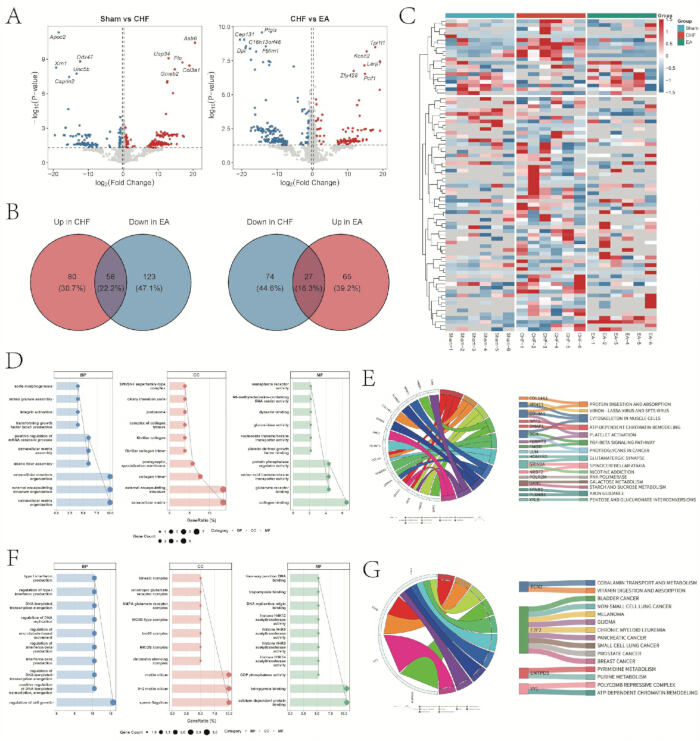
Figure 5 : Identification et analyse d'enrichissement fonctionnel des protéines modulées de manière différentielle par l'électroacupuncture dans le noyau du faisceau solitaire. (A) Diagrammes en volcan illustrant la répartition des protéines surexprimées et sous-exprimées dans les comparaisons Sham versus CHF et CHF versus EA. (B) Diagrammes de Venn représentant l'analyse d'intersection afin d'identifier les protéines centrales sous-exprimées et surexprimées après l'intervention par EA. (C) Carte thermique de regroupement hiérarchique des profils d'expression des protéines différentiellement exprimées. (D) Diagrammes en bulles GO détaillant les processus biologiques, composants cellulaires et fonctions moléculaires enrichis pour le sous-ensemble de protéines sous-exprimées. (E) Diagrammes en cordes et diagrammes de Sankey de KEGG représentant les voies de signalisation enrichies par les protéines sous-exprimées. (F) Diagrammes en bulles GO détaillant les processus biologiques, composants cellulaires et fonctions moléculaires enrichis pour le sous-ensemble de protéines surexprimées. (G) Diagrammes en cordes et diagrammes de Sankey de KEGG représentant les voies de signalisation enrichies par les protéines surexprimées. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
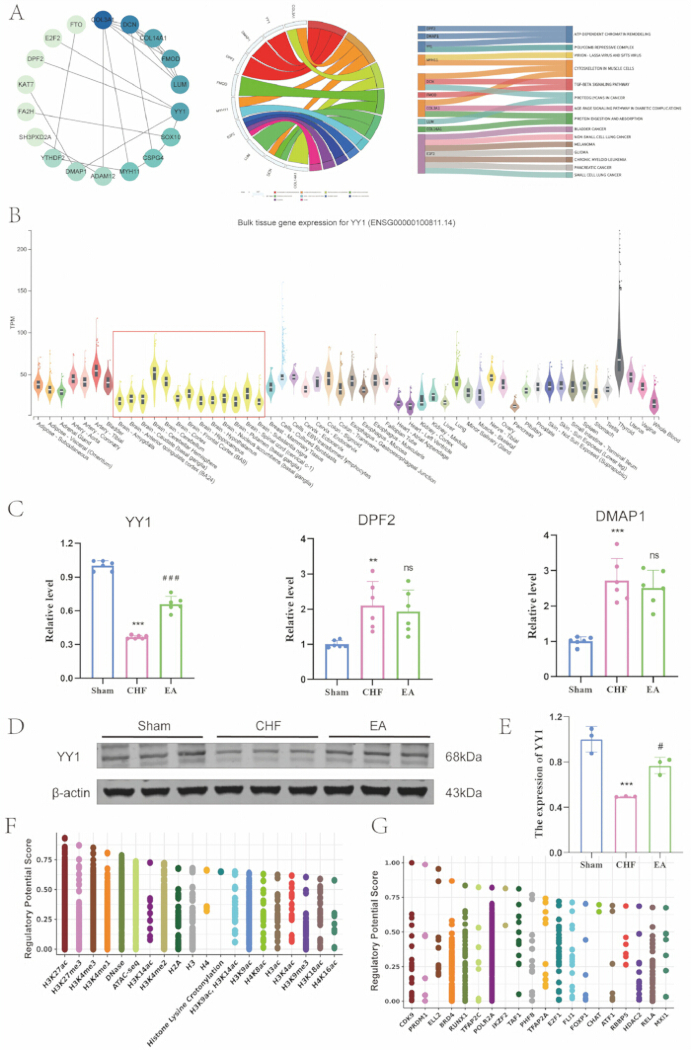
Figure 6 : La topologie du réseau, le profilage de l'expression tissulaire et la validation moléculaire identifient YY1 comme une cible candidate associée à l'électroacupuncture. (A) Réseau d'interactions protéine-protéine, diagramme en cordes et diagramme de Sankey des protéines centrales identifiées. (B) Profil d'expression tissulaire humain de YY1 dérivé de la base de données GTEx, la boîte rouge mettant en évidence les tissus cérébraux. (C) Analyse quantitative de l'expression des ARNm de YY1, DPF2 et DMAP1 dans le SNT selon les groupes (réplicats biologiques n = 6, moyenne ± écart-type). **p < 0,01, ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe CHF ; ns, non significatif par rapport au groupe CHF. (D) Bandes représentatives de Western blot de YY1 et de β-actine dans le SNT selon les groupes. (E) Analyse quantitative de l'expression protéique de YY1 selon les groupes (réplicats biologiques n = 3, moyenne ± écart-type). ***p < 0,001 par rapport au groupe Sham ; #p < 0,05 par rapport au groupe CHF. (F) Prédiction bioinformatique des modifications épigénétiques des histones régulant le locus YY1, basée sur les scores de potentiel régulateur. (G) Prédiction bioinformatique des facteurs de transcription en amont régulant le locus YY1, basée sur les scores de potentiel régulateur. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
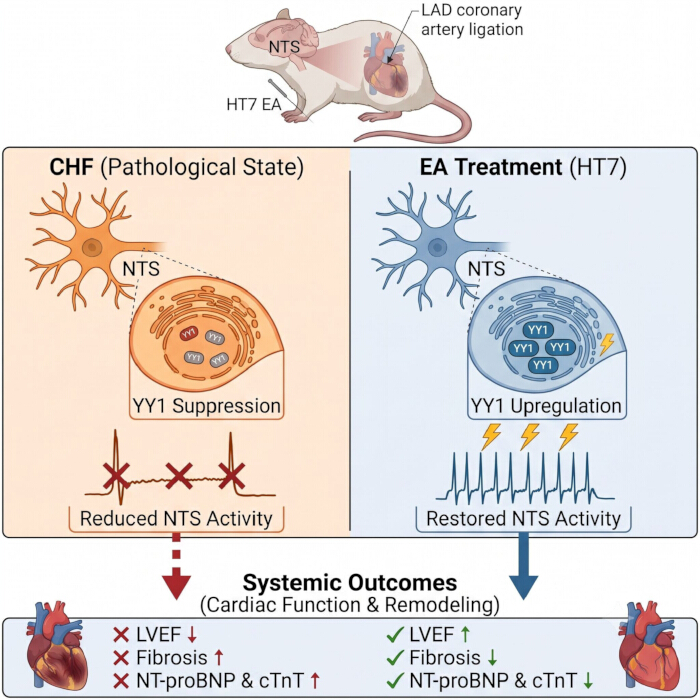
Figure 7 : Modèle proposé de l'association entre l'électroacupuncture au point HT7, la surexpression de YY1, la restauration de l'activité neuronale dans le noyau du faisceau solitaire et l'amélioration de l'insuffisance cardiaque chronique. (Gauche) État pathologique : Dans le modèle d'ICC induit par la ligature de l'artère coronaire descendante antérieure (LAD), l'activité neuronale au sein du NTS est réduite, accompagnée par la suppression du facteur de transcription YY1. Cette inhibition neuronale centrale est associée à un remodelage cardiaque pathologique, se manifestant par une diminution de la FEVG, une augmentation de la fibrose myocardique et une élévation des marqueurs sériques de l'insuffisance cardiaque. (Droite) Traitement par EA : L'intervention par électroacupuncture au niveau du point d'acupuncture HT7 induit une surexpression de YY1 dans le NTS et restaure la décharge neuronale. Cette neuromodulation centrale exerce des effets cardioprotecteurs, atténuant le remodelage pathologique et améliorant la fonction cardiaque systémique. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Figure supplémentaire 1 : Évaluation de la fonction cardiaque de la cohorte protéomique et profils d'expression tissulaire humaine des gènes centraux candidats. (A) Analyse quantitative de l'EFVG et de la SFVG entre les groupes (réplicats biologiques n = 12, moyenne ± ÉT). ***p < 0,001 par rapport au groupe Sham ; ###p < 0,001 par rapport au groupe IC. (B-J) Profils d'expression tissulaire humaine des gènes centraux candidats issus de la base de données GTEx, incluant COL3A1 (B), DMAP1 (C), DPF2 (D), FMOD (E), MYH11 (F), E2F2 (G), LUM (H), DCN (I) et COL14A1 (J).Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 1 : Matrice complète d'identification et de quantification du protéome global dans le noyau du faisceau solitaire. Ce tableau présente l'ensemble des données protéomiques quantitatives obtenues pour tous les groupes expérimentaux. Les colonnes importantes incluent l'identifiant de la protéine (numéro d'accession UniProt), le gène (symbole du gène), la première description de la protéine (annotation fonctionnelle), ainsi que les valeurs d'intensité protéique normalisées pour chaque réplicat biologique dans les groupes Sham, CHF et EA (n = 6 par groupe).Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 2 : Scores d'importance des variables en projection (VIP) du modèle OPLS-DA pour les protéines dans la comparaison faux opérés versus IC. Ce tableau répertorie les caractéristiques distinguant les groupes faux opérés et IC selon le modèle OPLS-DA. Les colonnes principales incluent « feature » (représentant l'identifiant de la protéine ou du gène spécifique) et la valeur VIP (importance de la variable en projection), qui indique la contribution de chaque caractéristique à la séparation des groupes (seuil VIP > 1,0).Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 3 : Scores d'importance des variables en projection OPLS-DA pour les protéines dans la comparaison ICN par rapport à AE. Ce tableau recense les caractéristiques distinguant les groupes ICN et AE selon le modèle OPLS-DA. De manière similaire au tableau S2, il inclut la colonne des caractéristiques et les valeurs VIP correspondantes, en mettant en évidence les caractéristiques les plus sensibles à l'intervention AE.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 4 : Liste détaillée des 85 protéines différentiellement exprimées, considérées comme protéines centrales, modulées par l'électroacupuncture. Ce tableau présente l'intersection des protéines significativement modifiées par l'insuffisance cardiaque congestive (CHF) puis inversées par l'intervention d'électroacupuncture (EA). Les colonnes importantes incluent Protein_ID, Gene, log2FC (logarithme en base 2 du rapport d'expression indiquant la variation d'expression), P_value pour la significativité statistique (seuil p < 0,05), et VIP_value évaluant la contribution au modèle.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 5 : Analyse d'enrichissement de l'ontologie génique du sous-ensemble de protéines principales régulées à la baisse. Ce tableau présente l'annotation fonctionnelle selon l'ontologie génique (GO) pour les 58 protéines régulées à la baisse par l'EA. Les colonnes importantes incluent ONTOLOGY (classée en Processus biologique [BP], Composant cellulaire [CC] et Fonction moléculaire [MF]), la description fonctionnelle, p.adjust (valeur p ajustée pour les tests multiples) et geneID, qui correspond aux gènes spécifiques enrichis pour chaque terme.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 6 : Analyse d'enrichissement des voies de la Kyoto Encyclopedia of Genes and Genomes pour le sous-ensemble de protéines centrales régulées à la baisse. Ce tableau illustre les cascades de signalisation enrichies pour les 58 protéines régulées à la baisse. Les colonnes principales incluent le Terme de la voie, la valeur p ajustée indiquant la signification statistique de l'enrichissement, ainsi que les gènes spécifiques en intersection impliqués dans chaque voie.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 7 : Analyse d'enrichissement de l'ontologie génique du sous-ensemble de protéines centrales surexprimées. Ce tableau présente l'annotation fonctionnelle selon l'ontologie génique (GO) pour les 27 protéines surexprimées par EA. Le format et les définitions des colonnes (ONTOLOGIE [BP, CC, MF], Description, p.adjust, geneID) sont identiques à ceux décrits dans le tableau S5.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 8 : Analyse d'enrichissement des voies de l'Encyclopédie de Kyoto des gènes et des génomes pour le sous-ensemble de protéines centrales surexprimées. Ce tableau illustre les cascades de signalisation enrichies pour les 27 protéines surexprimées. Le format et les définitions des colonnes (Terme, valeur p ajustée, Gènes) sont identiques à ceux détaillés dans le tableau S6.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 9 : Scores de connectivité topologique des 18 protéines centrales dérivées du réseau d'interactions protéine-protéine. Ce tableau résume les paramètres topologiques du réseau utilisés pour identifier les gènes centraux. Les colonnes principales incluent le nom du gène et des métriques centrales du réseau telles que le degré, la centralité d'intermédiarité et la centralité de proximité, qui quantifient l'importance relative et la connectivité de chaque nœud au sein du réseau biologique.Veuillez cliquer ici pour télécharger ce fichier.
Tableau supplémentaire 10 : Analyse d'enrichissement des voies de la base de données Kyoto Encyclopedia of Genes and Genomes pour les 18 protéines centrales du réseau. Ce tableau présente les voies de signalisation spécifiques enrichies exclusivement par les 18 protéines centrales identifiées. Les colonnes principales incluent le terme de la voie, la valeur p ajustée indiquant la significativité, ainsi que les gènes responsables de l'enrichissement fonctionnel.Veuillez cliquer ici pour télécharger ce fichier.
Fichier supplémentaire 1 : Scripts R utilisés pour l'analyse et la visualisation des données, ainsi que les images de western blot non recadrées. Le fichier supplémentaire contient les scripts R utilisés pour l'analyse de corrélation de Pearson, la génération de double diagramme en volcan et l'identification des protéines inversées par l'EA, l'analyse d'enrichissement en ontologie génique (GO), la génération de cartes thermiques de clustering hiérarchique, la visualisation de l'enrichissement dans l'Encyclopédie de Kyoto des gènes et des génomes (KEGG), l'analyse discriminante orthogonale des moindres carrés partiels (OPLS-DA) et les tests de permutation, l'analyse discriminante des moindres carrés partiels (PLS-DA), la génération de cartes thermiques de corrélation des échantillons protéomiques, ainsi que l'analyse de diagramme de Venn.Veuillez cliquer ici pour télécharger ce fichier.
Discussion
The present study investigated the central mechanisms of EA at the HT7 acupoint in the rat model of CHF. Physiological and histological data indicated that EA improved LVEF and attenuated myocardial fibrosis. In parallel with these peripheral changes, in vivo electrophysiological recordings and neural mapping supported that EA restored neuronal firing rates within the NTS. Through mass spectrometry-based proteomics, the molecular landscape of the NTS was mapped, and 85 differentially expressed proteins whose abnormal expression patterns were modulated by the intervention were identified. Subsequent topological analysis and tissue expression profiling isolated the transcription factor YY1 as a candidate biological target. Molecular validation indicated that EA upregulates YY1 expression. These findings construct a central molecular network for EA and suggest YY1 as a potential neurobiological target linking central autonomic regulation with the amelioration of CHF. The comprehensive central mechanisms are summarized in Figure 7.
The NTS serves as the integration center for central cardiovascular reflexes and autonomic regulation21,22. In the context of cardiovascular diseases, CHF involves sustained autonomic imbalance characterized by sympathetic overactivation and vagal withdrawal23. During the pathophysiological progression of this condition, the sensitivity of peripheral baroreceptors decreases, which reduces excitatory afferent inputs to the NTS24. Consequently, this neural blunting leads to a diminished activation of the caudal ventrolateral medulla and a subsequent disinhibition of the rostral ventrolateral medulla, culminating in excessive central sympathetic outflow25. In parallel with these mechanisms, the electrophysiological and histological data indicated that the spontaneous firing frequency and c-Fos expression of NTS neurons were reduced in the CHF state. As a targeted neuromodulation approach, EA-generated somatosensory afferent signals are theoretically proposed to be transmitted through peripheral nerves to the dorsal horn of the spinal cord and to ascend to brainstem structures, including the NTS26. The results indicated that EA intervention at the HT7 acupoint increased neural oscillatory energy and restored neuronal firing rate in this brain region. Physiologically, the restored NTS neuronal activity facilitates activation of inhibitory interneurons in the medulla, thereby suppressing hyperactive sympathetic premotor neurons while concurrently enhancing parasympathetic efferent signals27. Linking these central neural mechanisms to peripheral cardiovascular phenotypes, the correlation analysis supported that this central neural activation was positively associated with LVEF and negatively associated with the peripheral heart failure marker NT-proBNP. These findings indicate that EA may exert its peripheral cardioprotective effects by alleviating the pathological inhibition of NTS neurons and promoting central autonomic homeostasis.
To elucidate the molecular pathways underlying this central neuromodulation, the proteomic landscape of the NTS was analyzed. Mass spectrometry-based proteomics identified 85 proteins whose expression patterns were modulated by the intervention. Functional stratification revealed that a subset of 58 proteins downregulated by EA is prominently involved in extracellular matrix organization and the transforming growth factor β-signaling pathway. The extracellular matrix in the central nervous system forms an organized lattice, including perineuronal nets that physically enwrap synaptic terminals and regulate local ion homeostasis28. Under chronic pathological stress, such as heart failure, aberrant extracellular matrix deposition creates a restrictive microenvironment within the brainstem29. This structural remodeling physically impedes synaptic structural plasticity and maintains neural circuits in a state of sympathetic hyperactivity30. By modulating the expression of structural proteins, such as COL3A1 and COL14A1 alongside DCN, EA remodels this pathological extracellular barrier. Concurrently, the enrichment of related signaling cascades—categorized under the "cytoskeleton in muscle cells" KEGG pathway, which indicates general structural and integrin-mediated alterations rather than implying the actual presence of myocytes within the NTS—suggests that extracellular changes are transmitted into the intracellular compartment31. This mechanotransduction signaling restores the dynamic turnover of dendritic spines and regulates synaptic transmission and efficacy in the autonomic reflex arc32.
Beyond extracellular structural reorganization, functional annotation of the 27 proteins upregulated by the intervention indicated the involvement of ATP-dependent chromatin remodeling. Sustained cardiovascular autonomic imbalance is maintained by epigenetic restrictions, where condensed chromatin limits the accessibility of promoter regions for genes regulating neural inhibition33. ATP-dependent chromatin remodeling complexes use energy from ATP hydrolysis to slide or evict nucleosomes, thereby opening genomic loci for active transcription34. The enrichment of this pathway, alongside the positive regulation of DNA-templated transcription elongation, indicates that EA acts at the epigenetic level to remodel disease-associated transcriptional memory35. The structural relaxation of the extracellular microenvironment translates into nuclear epigenetic modifications, facilitating the coordinated transcription of neuroprotective gene networks bridged by key proteins such as YY1 and E2F236,37. To systematically isolate the biological target mediating the therapeutic efficacy of EA, a stepwise screening strategy was applied. The 85 differentially expressed proteins were filtered through topological network mapping and pathway enrichment analysis to identify 10 prominent hub candidates. Subsequent tissue expression profiling verified that only YY1 and DPF2, alongside DMAP1, are expressed in human brain tissues. In vivo molecular validation further excluded DPF2 and DMAP1 due to a lack of transcriptional responsiveness, confirming YY1 as a highly responsive candidate target. YY1 is a zinc-finger transcription factor that exerts control over central nervous system development and neuronal plasticity38. In mature neural circuits, YY1 functions as a neuroprotective regulator by maintaining mitochondrial homeostasis and mitigating oxidative stress39. During the pathological progression of CHF, sustained hemodynamic stress and peripheral inflammation induce metabolic dysfunction and structural damage in brainstem neurons40. The experimental data indicated that YY1 expression is suppressed in the NTS under CHF conditions, whereas EA intervention counteracted this pathological suppression. Based strictly on computational bioinformatics predictions rather than empirical validation, YY1 is hypothesized to interact with active histone modifications, such as H3K27ac and H3K4me3, to orchestrate the transcription of downstream neuroprotective gene networks 41. The restoration of YY1 activity may facilitate repair of neuronal metabolic pathways and promote the structural integrity of synaptic connections. Consequently, the modulated NTS neurons improve their capacity to process peripheral baroreflex inputs and exert inhibitory control over descending sympathetic premotor pathways, which ameliorates the cardiovascular deterioration associated with CHF42.
Despite these discoveries, several methodological limitations warrant rigorous consideration. First, the current experimental design relied on correlational omics and expression profiling without direct functional evidence. Future investigations must incorporate targeted genetic manipulations, such as viral vector-mediated knockdown or overexpression within the NTS, alongside empirical ChIP-seq or CUT&Tag assays, to definitively establish the causal role of YY1 and validate its downstream epigenetic networks. Second, excluding the Sham EA cohort from the proteomics phase limits our ability to definitively rule out molecular signatures induced by nonspecific somatosensory stimulation. However, comparing the CHF and EA groups relative to the Sham baseline is considered sufficient to isolate EA-specific molecular changes in the current design. This is because all non-intervention cohorts, specifically the Sham and CHF groups, underwent strict baseline standardization of daily isoflurane anesthesia exposure, which effectively minimized the most profound non-specific neurological stress confounders. Furthermore, our initial functional data showed that Sham EA did not elicit significant cardiovascular or neural activation relative to the CHF group, suggesting that superficial somatosensory stimulation without electrical current does not reach the threshold required to drive substantial central molecular reprogramming. Third, the study lacks standard non-acupoint control groups, which prevents the definitive confirmation of HT7 acupoint specificity. Furthermore, the proposed HT7-to-NTS afferent neural pathways remain speculative without direct neural tracing or nerve-blockade validation. Finally, the in vivo electrophysiology evaluated global NTS activity at a single time point without distinguishing between specific excitatory and inhibitory neuronal subpopulations, nor did it assess long-term neural plasticity. Subsequent research must address these critical gaps to refine the central neurobiological mechanisms.
Ultimately, by integrating these findings while acknowledging their correlational nature, this research provides a valuable molecular framework indicating that EA mitigates pathological cardiac remodeling by restoring NTS neuronal function. These data highlight YY1 as a highly responsive candidate target for central cardiovascular neuromodulation, offering novel neurobiological insights for the clinical application of acupuncture therapy in heart failure management.
Déclarations de divulgation
Tous les auteurs déclarent ne pas avoir de conflits d'intérêts. Les auteurs déclarent également qu'aucun outil d'intelligence artificielle n'a été utilisé lors de la préparation du manuscrit.
Remerciements
Nous tenons à exprimer notre profonde gratitude à tous les chercheurs qui ont contribué à cette étude et à reconnaître avec respect le sacrifice des animaux expérimentaux. Ce travail a été soutenu par le Programme national clé de recherche et de développement de Chine (subvention no 2022YFC3500500 et 2022YFC3500502) et par le Programme universitaire de soutien aux talents Xu Nenggui (subvention no DT2400000222). Les financeurs n'ont joué aucun rôle dans la conception de l'étude, la collecte et l'analyse des données, la décision de publier ou la rédaction du manuscrit.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Rats mâles adultes Sprague-Dawley | Liaoning Changsheng Biotechnology Co., Ltd. | No. SCXK (LIAO) 2025-0001 | RGD_70508 |
| Aiguilles d'acupuncture | Suzhou Tianxie Acupuncture Instrument Co., Ltd. | — | — |
| Milieu de montage antifade avec DAPI | Aibixin Biotechnology Co., Ltd. | abs9235-25ml | — |
| Anticorps primaire anti-YY1 | Proteintech Group, Inc | 66281-1-Ig | AB_2881664 |
| Anticorps primaire anti-Beta Actin | 66009-1-Ig | AB_2687938 | |
| Albumine sérique de bovin (BSA) | Sigma Odellie Trading Co., Ltd. | V900933 | — |
| Kit d'essai protéique BCA | Shanghai Biyuntian Biotechnology Co., Ltd. | P0012S | — |
| c-Fos (9F6) Ac monoclonal de lapin | Sai Xin Tong Biological Reagents Co., Ltd. | 2250S | AB_2247211 |
| Cytoscape | The Cytoscape Consortium | version 3.2.1 | SCR_003032 |
| ChamQ Universal SYBR qPCR Master Mix | Vazyme Biotech Co., Ltd. | Q711-02 | — |
| Appareil d'électroacupuncture | Nanjing Jisheng Medical Technology Co., Ltd. | HANS-200A | — |
| Matrice microélectrode huit canaux (2 × 4) | Kewa Suzhou Medical Technology Co., Ltd. | - | — |
| Kit ELISA (NT-proBNP) | Wuhan Enzyme Immuno-Biotechnology Co., Ltd. | MM-0329R1 | — |
| Kit ELISA (cTnT) | MM-0795R2 | — | |
| Kit de chimiluminescence améliorée | Proteintech Group, Inc | PK10001 | — |
| Immunoglobuline G de chèvre anti-lapin | Aimee Technology Co., Ltd. | 111-545-003 | AB_2338046 |
| Anticorps secondaire IgG de chèvre anti-souris conjugué à la HRP | BeiJing Cowin Biotech Co.,Ltd. | CW0102 | N/A |
| HiScript III RT SuperMix | Vazyme Biotech Co., Ltd. | R323-01 | — |
| Logiciel ImageJ | National Institutes of Health | version 4.0 | SCR_003070 |
| Système d'imagerie | Bio-Rad Laboratories, Inc | ChemiDoc MP | |
| Machine d'anesthésie pour petit animal à plusieurs canaux | RWD Life Science Co., Ltd | R510-22-10 | — |
| Microscope | Olympus Optical Co., Ltd. | DP72 | — |
| Logiciel NeuroExplorer | Beijing Plexon Technology Co., Ltd. | version 5.0 | SCR_001818 |
| Logiciel Offline Sorter | Beijing Plexon Technology Co., Ltd. | version 4.7.2 | SCR_000012 |
| Orbitrap Astral | Thermo Fisher Scientific | — | — |
| Système standard Powerlab dérivaison des membres II | AD Instruments International Trading Co., Ltd. | ML118 | — |
| Colonne PepMap Neo Trap | Thermo Fisher Scientific | — | — |
| Inhibiteurs de phosphatase | Shanghai Biyuntian Biotechnology Co., Ltd. | P1081 | — |
| Logiciel R | — | version 4.5.2 | SCR_001905 |
| Solution de lyse RIPA | Yeasen Biotechnology Co., Ltd. | 20115ES60 | — |
| RNAiso Plus | TaKaRa Biotechnology Co., Ltd. | 9108 | — |
| Système d'échographie numérique pour petit animal | Feiyino Technology Co., Ltd. | VINNO6 Lab | — |
| Logiciel statistique | GraphPad Software | Version 8.0 | SCR_002798 |
| Système d'acquisition multicanal OmniPlex | Beijing Plexon Technology Co., Ltd. | version 1.20.0 | — |
| Triton X-100 | Beijing Solab Technology Co., Ltd. | 22298142 | — |
| Système Vanquish Neo UHPLC | Thermo Fisher Scientific | — | — |
| Colonne µPAC Neo à haut débit | Thermo Fisher Scientific | — | — |
Références
- Valente V, et al. The global epidemiology of heart failure: a comprehensive and contemporary review. Eur J Heart Fail. 2026.
- Triposkiadis F, et al. The sympathetic nervous system in heart failure physiology, pathophysiology, and clinical implications. J Am Coll Cardiol. 2009;54(19):1747-62.
- Arshad MS, et al. Sympathetic nervous system in heart failure: targets for treatments. Curr Hypertens Rep. 2025;27(1):20.
- Fan H, et al. The hypotensive role of acupuncture in hypertension: clinical study and mechanistic study. Front Aging Neurosci. 2020;12:138.
- Zuo H, et al. Electroacupuncture alleviates acute myocardial ischemic injury in mice by regulating the β1 adrenergic receptor and post-receptor protein kinase A signaling pathway. Acupunct Med. 2024;42(6):342-55.
- Wu HS, et al. Neural mechanism of HT7 electroacupuncture in myocardial ischemia: critical role of the paraventricular nucleus oxytocin system. Front Neurosci. 2025;19:1678938.
- Kun W, et al. Electroacupuncture ameliorates cardiac dysfunction in myocardial ischemia model rats: a potential role of the hypothalamic-pituitary-adrenal axis. J Tradit Chin Med. 2023;43(5):944-54.
- Xu W, et al. Electroacupuncture ameliorates chronic heart failure: the role of CRH neurons in the paraventricular nucleus of the hypothalamus. Front Neurosci. 2026;20:1741523.
- Andresen MC, Kunze DL. Nucleus tractus solitarius--gateway to neural circulatory control. Annu Rev Physiol. 1994;56:93-116.
- Craft GE, et al. Recent advances in quantitative neuroproteomics. Methods. 2013;61(3):186-218.
- Charan J, Kantharia ND. How to calculate sample size in animal studies? J Pharmacol Pharmacother. 2013;4(4):303-6.
- Zhou J, et al. Electroacupuncture pretreatment mediates sympathetic nerves to alleviate myocardial ischemia-reperfusion injury via CRH neurons in the paraventricular nucleus of the hypothalamus. Chin Med. 2024;19(1):43.
- Litwin SE, et al. Serial echocardiographic assessment of left ventricular geometry and function after large myocardial infarction in the rat. Circulation. 1994;89(1):345-54.
- Shu Q, et al. Electroacupuncture alleviates myocardial ischemia-reperfusion injury by inhibiting hypothalamic paraventricular nucleus neurons projecting to the rostral ventrolateral medulla. Eur J Neurosci. 2024;60(5):4861-76.
- Wan F, et al. Electroacupuncture improves cerebral blood flow in vascular cognitive impairment mice by activating the locus coeruleus-prefrontal cortex circuit. Neuroscience. 2025;583:33-42.
- Xu R, et al. Electroacupuncture ameliorates incisional pain via suppressing IL-33 signaling-related macrophage infiltration and ROS overproduction in incised skin. Chin Med. 2026;21(1):26.
- Quiroga RQ, et al. Unsupervised spike detection and sorting with wavelets and superparamagnetic clustering. Neural Comput. 2004;16(8):1661-87.
- Goldwyn JH, et al. Gain control with A-type potassium current: IA as a switch between divisive and subtractive inhibition. PLoS Comput Biol. 2018;14(7):e1006292.
- Buzsáki G. Large-scale recording of neuronal ensembles. Nat Neurosci. 2004;7(5):446-51.
- Zhang J, Mifflin SW. Responses of aortic depressor nerve-evoked neurones in rat nucleus of the solitary tract to changes in blood pressure. J Physiol. 2000;529(Pt 2):431-43.
- Benarroch EE. The central autonomic network: functional organization, dysfunction, and perspective. Mayo Clin Proc. 1993;68(10):988-1001.
- Scheitz JF, et al. Bidirectional brain-heart interactions in health and disease. Nat Rev Neurol. 2026;22(4):209-25.
- Floras JS. Sympathetic nervous system activation in human heart failure: clinical implications of an updated model. J Am Coll Cardiol. 2009;54(5):375-85.
- Iannetta D, et al. Dissecting the exercise pressor reflex in heart failure: a multi-step failure. Auton Neurosci. 2025;259:103269.
- Sved AF, et al. Baroreflex dependent and independent roles of the caudal ventrolateral medulla in cardiovascular regulation. Brain Res Bull. 2000;51(2):129-33.
- Liu Y, et al. Neurophysiological basis of electroacupuncture stimulation in the treatment of cardiovascular-related diseases: vagal interoceptive loops. Brain Behav. 2024;14(10):e70076.
- Zhou W, Benharash P. Effects and mechanisms of acupuncture based on the principle of meridians. J Acupunct Meridian Stud. 2014;7(4):190-3.
- Fawcett JW, et al. The roles of perineuronal nets and the perinodal extracellular matrix in neuronal function. Nat Rev Neurosci. 2019;20(8):451-65.
- Moon S, Ito Y. Vasculature cells control neuroglial co-localization and synaptic connection in a central nervous system tissue mimic system. Hum Cell. 2023;36(6):1938-47.
- Ferrer-Ferrer M, Dityatev A. Shaping synapses by the neural extracellular matrix. Front Neuroanat. 2018;12:40.
- Rabinowitch I, et al. Understanding neural circuit function through synaptic engineering. Nat Rev Neurosci. 2024;25(2):131-9.
- McGeachie AB, et al. Stabilising influence: integrins in regulation of synaptic plasticity. Neurosci Res. 2011;70(1):24-9.
- Qiu L, et al. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Clapier CR, et al. Mechanisms of action and regulation of ATP-dependent chromatin-remodelling complexes. Nat Rev Mol Cell Biol. 2017;18(7):407-22.
- Du W, et al. Mechanisms of chromatin-based epigenetic inheritance. Sci China Life Sci. 2022;65(11):2162-90.
- Rashid F, et al. Mechanomemory of nucleoplasm and RNA polymerase II after chromatin stretching by a microinjected magnetic nanoparticle force. Cell Rep. 2024;43(7):114462.
- Weintraub AS, et al. YY1 is a structural regulator of enhancer-promoter loops. Cell. 2017;171(7):1573-88.e28.
- Zurkirchen L, et al. Yin Yang 1 sustains biosynthetic demands during brain development in a stage-specific manner. Nat Commun. 2019;10(1):2192.
- Cunningham JT, et al. mTOR controls mitochondrial oxidative function through a YY1-PGC-1alpha transcriptional complex. Nature. 2007;450(7170):736-40.
- van Weperen VYH, Vaseghi M. The brain-heart axis: effects of cardiovascular disease on the CNS and opportunities for central neuromodulation. Nat Rev Neurosci. 2026;27(3):159-77.
- Lam JC, et al. YY1-controlled regulatory connectivity and transcription are influenced by the cell cycle. Nat Genet. 2024;56(9):1938-52.
- Montuoro S, et al. Neuroimmune cross-talk in heart failure. Cardiovasc Res. 2025;121(4):550-67.