Huit semaines d'exercice sur tapis roulant ont été associées à des modifications transcriptionnelles cardiaques, de la barrière intestinale et liées à Nlrp3, ainsi qu'à une altération de la microflore intestinale, en particulier une augmentation d'Akkermansia muciniphila, chez des souris diabétiques.
Article de recherche
L'exercice sur tapis roulant est associé à des modifications de la barrière intestinale et de l'expression du gène Nlrp3 cardiaque chez les souris diabétiques
Dans cet article
Résumé
Résumé
Cette étude a examiné les associations entre l'exercice, l'expression génique liée à la barrière intestinale et le fonctionnement cardiaque Nlrp3 l'expression des gènes liés à l'inflammasome dans un modèle murin de diabète. Une dysrégulation métabolique a été induite chez des souris mâles C57BL/6J à l'aide d'un régime riche en lipides combiné à une faible dose de streptozotocine, suivie de 8 semaines d'exercice sur tapis roulant (5° pente, 12 m/min, 20 à 50 min/jour, 5 jours/semaine). Par rapport aux souris diabétiques sédentaires, les souris soumises à l'exercice présentaient une glycémie à jeun plus faible, une résistance à l'insuline réduite et des niveaux sériques de lipides plus bas, ainsi qu'une plus forte concentration colique Occludine expression d'ARNm (expression relative : 0,38 ± 0,04 chez les souris diabétiques contre 0,79 ± 0,05 chez les souris exercées, P < 0,001), fonction cardiaque inférieure Nlrp3, IL-1β, TNF-α, Col1a1, et Tgfb1 expression des ARNm, et un rapport Bax/Bcl-2 ARNm plus faible (3,06 ± 0,19 contre 1,48 ± 0.10, P < 0,001). L'analyse qPCR des selles pour six taxons sélectionnés a montré que l'exercice était associé à une augmentation des abondances relatives de Akkermansia muciniphila (0.31 ± 0,04 à 0,84 ± 0,07) et Lactobacillus (0.48 ± 0,05 à 1,01 ± 0,07) et diminution Escherichia coli (3.84 ± 0,33 à 1,68 ± 0.13, P < 0,01). Chez les souris ayant fait de l'exercice, A. muciniphila l'abondance était négativement corrélée avec le cœur Nlrp3 expression des ARNm (R = −0,81, P = 0,0046). Ces résultats corrélations indiquent des associations entre l'exercice, les modifications transcriptionnelles cardiaques et intestinales, et certaines taxons microbiens intestinaux chez des souris diabétiques, mais n'établissent pas de relations de causalité. Toutes les observations moléculaires se limitent à des variations au niveau de l'ARNm et ne démontrent pas la fonction de la barrière intestinale, l'activation de l'inflammasome, la fibrose myocardique, l'apoptose ou d'autres effets fonctionnels ou au niveau protéique.
Introduction
Le diabète sucré est une menace croissante pour la santé mondiale, et les complications cardiaques diabétiques restent des affections graves pour lesquelles les thérapies spécifiques sont limitées1,2,3,4. L'entraînement physique peut améliorer la fonction cardiaque chez les modèles animaux diabétiques5,6, mais les mécanismes sous-jacents, en particulier ceux impliquant la microflore intestinale et la barrière intestinale, ne sont pas encore complètement élucidés.
Le microbiote intestinal régule le métabolisme et l'immunité de l'hôte7. Dans le diabète, une dysbiose intestinale et une altération de l'intégrité de la barrière intestinale peuvent augmenter la translocation du lipopolysaccharide (LPS), favoriser une inflammation médiée par TLR4 et aggraver les lésions myocardiques8,9. Ce fardeau inflammatoire d'origine intestinale pourrait contribuer à la progression des complications diabétiques, notamment le dysfonctionnement cardiaque. Des bactéries bénéfiques telles que Akkermansia et Faecalibacterium peuvent être réduites, tandis que des bactéries telles que E. coli peuvent augmenter10,11. De telles modifications microbiennes pourraient contribuer à une inflammation intestinale locale et à une endotoxémie systémique, affectant potentiellement des organes distants, notamment le cœur. L'inflammasome NLRP3 est un médiateur important de l'inflammation cardiaque dans la pathologie cardiaque diabétique, et son activation pourrait être modulée par des métabolites microbiens intestinaux12,13. Certains produits microbiens, en particulier les acides gras à chaîne courte et le LPS, exercent des effets opposés sur la préparation et l'assemblage de NLRP3, suggérant une association potentielle entre l'environnement microbien intestinal et l'état inflammatoire myocardique.
L'exercice peut modifier le microbiote intestinal et améliorer la fonction de la barrière intestinale14,15, mais les associations entre l'exercice, l'expression des gènes liés à la barrière intestinale et l'expression des gènes liés à l'inflammasome cardiaque NLRP3 dans les modèles diabétiques restent incomplètement comprises. L'épithélium intestinal constitue une interface entre les microbes de la lumière intestinale et la circulation systémique, et pourrait donc contribuer aux relations entre les modifications du microbiote intestinal et les réponses inflammatoires cardiaques. Toutefois, des preuves expérimentales directes établissant un lien de causalité entre les modifications induites par l'exercice de la barrière intestinale, l'activation de l'inflammasome NLRP3 et la protection cardiaque dans les modèles diabétiques font encore défaut.
L'hypothèse était donc que l'exercice sur tapis roulant serait associé à des modifications transcriptionnelles cardiaques, à des changements dans certains taxons microbiens intestinaux, au maintien de l'expression génique liée à la barrière intestinale et à une réduction de l'expression génique cardiaque liée à l'inflammasome NLRP3 chez des souris diabétiques. Un modèle de souris diabétique a été établi à l'aide d'un régime riche en graisses combiné à une faible dose de streptozotocine, suivi d'une intervention d'exercice sur tapis roulant de 8 semaines. Les évaluations comprenaient des paramètres métaboliques, l'expression de l'ARNm d'Occludin dans le côlon, l'expression génique cardiaque liée à l'inflammasome NLRP3, ainsi que des marqueurs d'expression génique inflammatoires, fibrotiques et apoptotiques. Certains taxons microbiens intestinaux ont également été quantifiés afin d'évaluer les modifications associées à l'exercice au sein du microbiote intestinal. Des analyses de corrélation ont été utilisées pour examiner les associations entre certains taxons microbiens intestinaux, l'expression génique liée à la barrière intestinale et les marqueurs transcriptionnels cardiaques. Ces analyses avaient pour objectif d'identifier des associations, sans établir un mécanisme causal reliant la barrière intestinale à l'activation de NLRP3.
Protocole
Toutes les procédures animales ont été réalisées dans un établissement agréé par une organisation internationale d'accréditation en matière de soins aux animaux de laboratoire. Le protocole a été examiné et approuvé par le comité institutionnel de soins et d'utilisation des animaux (IACUC ; numéro d'approbation : VS212500103). Les expériences ont été menées dans un établissement externe agréé, car l'institution d'origine ne disposait pas d'un établissement autorisé pour ce modèle spécifique.
Mise en place du modèle murin de diabète
Des souris mâles C57BL/6J (âgées de 8 semaines, de grade sans agents pathogènes spécifiques, pesant 20–22 g) ont été acclimatées pendant 1 semaine dans des conditions contrôlées (22 ± 2 °C, 50 ± 10 % d'humidité relative, cycle lumière/obscurité de 12 h) avec un accès ad libitum à une alimentation standard et à de l'eau.
Après l'acclimatation, les souris ont été réparties aléatoirement à l'aide d'une table de nombres aléatoires en un groupe témoin normal (Témoin, n = 10) ou un groupe d'induction du diabète. Les procédures expérimentales et les mesures des résultats ont été effectuées par des investigateurs aveugles quant à l'affectation aux groupes. Les animaux étaient logés quatre par cage dans des cages standard en polycarbonate avec une litière enrichie, dans des conditions sans agents pathogènes spécifiques. Seules des souris mâles ont été utilisées afin de minimiser les variations potentielles liées aux cycles œstraux et parce que le modèle régime riche en graisses/streptozotocine produisait des phénotypes métaboliques plus reproductibles chez les mâles.
Les souris ayant subi une induction du diabète ont reçu une alimentation riche en lipides (60 % des kcal provenant des lipides) pendant 4 semaines, suivie d'injections intrapéritonéales de streptozotocine (STZ ; 30 mg/kg de poids corporel) pendant 5 jours consécutifs. La STZ a été fraîchement dissoute dans un tampon citrate 0,1 mol/L (pH 4,5), protégée de la lumière et administrée dans les 15 minutes suivant sa préparation. Les souris témoins ont reçu des volumes équivalents de tampon citrate. Une semaine après la dernière injection, la glycémie à jeun (FBG) a été mesurée à partir du sang prélevé au bout de la queue après un jeûne de 6 heures. Les souris présentant une FBG ≥ 11,1 mmol/L ont été considérées comme diabétiques. Ces souris ont été maintenues sous l'alimentation riche en lipides pendant 4 semaines supplémentaires afin de permettre le développement de modifications de l'expression génique liées au diabète.
Un total de 35 souris ont subi l'induction du modèle, dont 28 ont satisfait au critère de diabète. Le poids corporel et l'ingestion alimentaire ont été surveillés hebdomadairement, mais n'ont pas été utilisés comme critères d'exclusion. Aucun animal n'est décédé ni n'a été exclu durant les phases de modélisation ou d'intervention. Les souris correctement modélisées ont été divisées aléatoirement en un groupe diabétique (DM, n = 10) et un groupe d'intervention par exercice (DM+Ex, n = 10). La taille finale de l'échantillon était de n = 10 par groupe pour toutes les analyses, chaque souris individuelle constituant l'unité expérimentale.
Intervention par exercice sur tapis roulant
Les souris du groupe DM+Ex ont effectué un exercice sur tapis roulant avec une pente de 5° et une vitesse de 12 m/min, 5 jours par semaine pendant 8 semaines. Toutes les séances d'exercice ont été réalisées entre 9 h 00 et 11 h 00. Avant l'intervention, les souris ont été habituées à la course sur tapis roulant pendant 3 jours à une vitesse de 6 m/min pendant 5 min/jour avec une pente de 0°. Chaque séance d'exercice comprenait un échauffement de 5 min à 6 m/min et une période de récupération de 5 min à 6 m/min. Une légère stimulation mécanique a été utilisée pour encourager la course, et aucune stimulation électrique n'a été appliquée.
Les durées quotidiennes de course étaient de 20 min en semaine 1, 25 min en semaine 2, 30 min en semaine 3, 35 min en semaine 4, 40 min en semaine 5, 45 min en semaine 6, et 50 min aux semaines 7 à 8. Les souris témoins et DM ont été placées sur des tapis roulants immobiles pendant des durées équivalentes afin de contrôler les effets de la manipulation et de l'exposition environnementale. Un critère d'exclusion prédéfini était de ne pas avoir complété plus de 80 % des séances d'exercice prescrites. Aucun animal n'a satisfait à ce critère ; tous les animaux ont complété les séances d'exercice prescrites, et aucun événement indésirable n'a été observé.
Collecte des échantillons
Douze heures après la dernière séance d'exercice, les souris ont été privées de nourriture pendant 6 h et anesthésiées par inhalation d'isoflurane (3 % pour l'induction et 1,5–2 % pour le maintien dans du O₂ à 100 % à 1 L/min). Environ 500 µL de sang ont été prélevés à partir du plexus veineux rétro-orbitaire, laissés à coaguler à température ambiante pendant 30 min, puis centrifugés à 3 000 × g pendant 15 min à 4 °C. Le sérum obtenu a été stocké à −80 °C.
Les souris ont ensuite été euthanasiées par dislocation cervicale sous anesthésie profonde. Les cœurs ont été rapidement excisés et rincés avec une solution saline tamponnée au phosphate (PBS) glacée. Le tissu du ventricule gauche a été isolé ; une partie a été congelée instantanément dans l'azote liquide et stockée à −80 °C pour l'extraction d'ARN, et le tissu restant a été fixé dans du paraformaldéhyde à 4 %. Environ 1 cm de tissu colique distal a été prélevé, rincé au PBS, congelé instantanément et stocké à −80 °C. Des échantillons frais de selles ont été recueillis directement du rectum entre 9 h 00 et 10 h 00 afin de minimiser la contamination par la cage, transférés dans des tubes stériles et stockés à −80 °C dans les 15 minutes suivant le prélèvement.
Mesures biochimiques sériques
La glycémie à jeun (FBG) a été mesurée à l'aide d'un système de mesure de la glycémie. L'insuline sérique a été déterminée par dosage immunoenzymatique (ELISA), et le cholestérol total ainsi que les triglycérides ont été mesurés à l'aide d'un analyseur biochimique automatisé. La résistance à l'insuline a été calculée selon le modèle d'évaluation de l'homéostasie : HOMA-IR = FBG (mmol/L) × insuline (mIU/L)/22,5.
Extraction d'ARN et PCR quantitative en temps réel à partir de tissu myocardique
Environ 30 mg de tissu du ventricule gauche ont été homogénéisés dans un réactif d'extraction d'ARN à base de phénol-guanidinium, et l'ARN total a été extrait selon le protocole du réactif. La concentration et la pureté de l'ARN ont été évaluées par spectrophotométrie, un rapport A260/A280 compris entre 1,8 et 2,0 étant considéré comme acceptable. L'ARN total (1 µg) a été rétrotranscrit en ADN complémentaire (ADNc).
Une PCR quantitative (qPCR) a été réalisée dans un mélange réactionnel de 20 µL contenant un mélange maître fluorescent de liaison à l'ADN pour qPCR, 0,4 µmol/L de chacun des amorces directs et inverses, et 2 µL de matrice d'ADNc. Les conditions d'amplification étaient de 95 °C pendant 30 s, suivies de 40 cycles de 95 °C pendant 5 s et de 60 °C pendant 34 s. Une analyse de courbe de fusion a été effectuée dans la plage de 65 à 95 °C afin de vérifier la spécificité de l'amplification. Toutes les réactions ont été réalisées en double, et des témoins sans matrice et sans transcriptase inverse ont été inclus. Les efficacités d'amplification pour toutes les paires d'amorces variaient entre 90 et 105 %. Les amorces pour Tnfa, Il1b, Tgfb1, Col1a1, Nlrp3 et Gapdh sont indiquées dans Tableau 1. L'expression relative des gènes a été calculée selon la méthode 2−ΔΔCt et exprimée en facteur de variation par rapport au groupe Témoin.
Extraction de l'ADN des microbiotes fécaux et quantification par qPCR
L'ADN microbien total a été extrait d'échantillons fécaux à l'aide d'un protocole d'extraction de l'ADN fécal. Les abondances relatives de six taxons bactériens sélectionnés — Faecalibacterium prausnitzii, Akkermansia muciniphila, le genre Lactobacillus, le genre Bifidobacterium, Escherichia coli et le genre Desulfovibrio — ont été déterminées par qPCR à l'aide de primers spécifiques à chaque taxon indiqués dans le Tableau 1. Des primers universels des bactéries ciblant l'ARNr 16S ont été utilisés comme référence pour l'abondance bactérienne totale.
L'abondance relative a été calculée selon la méthode 2−ΔΔCt, en utilisant l'ARNr 16S bactérien total comme référence, puis normalisée par rapport au groupe témoin. Des courbes standards ont été établies pour chaque cible à l'aide de dilutions sériées d'ADN plasmidique à des concentrations connues afin de vérifier l'efficacité de l'amplification. Toutes les réactions ont été réalisées en double avec une analyse de la courbe de fusion. Étant donné que les taxons bactériens présentent un nombre variable de copies du gène de l'ARNr 16S, les résultats ont été exprimés en abondance relative selon 2−ΔΔCt plutôt qu'en nombre absolu de copies.
Évaluation de l'expression de l'occludine colique
Environ 30 mg de tissu colique ont été utilisés pour l'extraction d'ARN total et la synthèse d'ADNc comme décrit précédemment. L'expression des ARNm d'Occludin a été mesurée par qPCR à l'aide des amorces suivantes : sens, 5′-GTCGAATGTCTTTGCTGGTGGT-3′ ; antisens, 5′-GCAGCAGCCATGTACTCTTCAC-3′. Gapdh a été utilisé comme référence interne, et l'expression relative a été calculée selon la méthode 2−ΔΔCt.
Analyse statistique
Les données ont été présentées comme moyenne ± écart type (SD). La normalité a été évaluée à l'aide du test de Shapiro-Wilk, et l'homogénéité des variances a été évaluée à l'aide du test de Levene. Les données intergroupes satisfaisant aux hypothèses paramétriques ont été analysées à l'aide d'une analyse de variance à un facteur (ANOVA), suivie du test de différence significative honnête de Tukey (HSD) pour des comparaisons par paires post hoc. Les comparaisons entre deux groupes ont été effectuées à l'aide d'un test t de Student non apparié bilatéral.
Le coefficient de corrélation de Spearman a été utilisé pour évaluer les associations entre les variables. Pour la carte thermique de corrélation, les corrélations partielles de Spearman, ajustées en fonction du groupe expérimental, ont été calculées. Les valeurs P ont été corrigées pour les comparaisons multiples à l’aide de la procédure de taux de fausses découvertes (FDR) de Benjamini-Hochberg, et une valeur P corrigée par FDR < 0,05 a été considérée comme statistiquement significative. Les tailles d’effet (Cohen's f pour l’ANOVA et r pour les corrélations) ainsi que les intervalles de confiance à 95 % pour les différences moyennes principales ont été indiqués lorsque cela était applicable. Toutes les analyses statistiques ont été réalisées à l’aide d’un logiciel de calcul statistique (version 4.2.0).
Résultats
L'exercice sur tapis roulant a été associé à l'amélioration des anomalies métaboliques chez les souris diabétiques
Par rapport au groupe témoin, les souris diabétiques présentaient une glycémie à jeun significativement plus élevée (18,23 ± 0,61 contre 6,03 ± 0,21 mmol/L, P < 0,001), une insuline sérique (16,30 ± 1,04 contre 8,23 ± 0,38 mIU/L, P < 0,001), un indice HOMA-IR (13,19 ± 1,18 contre 2,21 ± 0,17, P < 0,001), un cholestérol total (4,62 ± 0,23 contre 2,01 ± 0,09 mmol/L, P < 0,001) et des triglycérides (2,12 ± 0,15 contre 0,80 ± 0,08 mmol/L, P < 0,001) plus élevés. Après l'intervention d'exercice sur tapis roulant de 8 semaines, ces paramètres ont diminué respectivement à 12,03 ± 0,63 mmol/L, 10,61 ± 0,71 mIU/L, 5,69 ± 0,67, 3,09 ± 0,24 mmol/L et 1,20 ± 0,14 mmol/L, par rapport aux souris diabétiques (P < 0,01 ou P < 0,001) ; toutefois, la plupart des valeurs sont restées supérieures à celles du groupe témoin (Figure 1A–E). Une ANOVA à un facteur a révélé des effets de groupe significatifs pour tous les paramètres (tous F(2,27) > 25,0, P < 0,001).
L'entraînement physique a été associé à une expression plus élevée de l'ARNm d'Occludin dans le côlon et à une expression plus faible des gènes liés à l'inflammasome cardiaque
Chez les souris diabétiques, l'expression de l'ARNm de Occludin au niveau colique était d'environ 62 % inférieure à celle du groupe témoin (0,38 ± 0,04 contre 1,00 ± 0,06, P < 0,001). Parallèlement, l'expression cardiaque des ARNm de Nlrp3, Il1b et Tnfa augmentait respectivement de 5,6 fois, 6,5 fois et 5,1 fois par rapport aux valeurs témoins (tous les P < 0,001). Après l'intervention par exercice, l'expression de l'ARNm de Occludin augmentait à 0,79 ± 0,05 (P < 0,001 par rapport aux souris diabétiques), tandis que l'expression des ARNm de Nlrp3, Il1b et Tnfa diminuait respectivement à 2,30 ± 0,21, 2,66 ± 0,25 et 2,14 ± 0,17 (tous les P < 0,001 par rapport aux souris diabétiques ; Figure 2A–D).
L'exercice était associé à une expression génique plus faible des gènes liés à la fibrose myocardique et à l'apoptose
Le groupe diabétique a présenté une expression cardiaque accrue des gènes liés à la fibrose Col1a1 (4,46 ± 0,29 fois, P < 0,001) et Tgfb1 (4,17 ± 0,24 fois, P < 0,001), ainsi qu’un rapport ARNm Bax/Bcl2 plus élevé (3,06 ± 0,19, P < 0,001) par rapport au groupe témoin. Après l'entraînement physique, l'expression des ARNm de Col1a1 et de Tgfb1 a diminué respectivement à 2,02 ± 0,16 et 1,92 ± 0,16 (les deux P < 0,001 par rapport aux souris diabétiques), et le rapport ARNm Bax/Bcl2 a diminué à 1,48 ± 0,10 (P < 0,001 par rapport aux souris diabétiques ; Figure 3A–C).
L'exercice était associé à des modifications de certains taxons microbiens intestinaux chez les souris diabétiques
Par rapport au groupe témoin, les souris diabétiques présentaient des abondances relatives significativement plus faibles de quatre taxons bactériens sélectionnés : F. prausnitzii (0,25 ± 0,03 contre 1,01 ± 0,07), A. muciniphila (0,31 ± 0,04 contre 1,00 ± 0,06), Lactobacillus (0,48 ± 0,05 contre 0,99 ± 0,04) et Bifidobacterium (0,56 ± 0,06 contre 1,00 ± 0,06 ; tous les P < 0,001). En revanche, les abondances relatives d'E. coli (3,84 ± 0,33 contre 0,99 ± 0,08) et de Desulfovibrio (3,07 ± 0,26 contre 0,99 ± 0,07) étaient significativement plus élevées (les deux P < 0,001). L'intervention par l'exercice était associée à des abondances relatives significativement plus élevées de F. prausnitzii, A. muciniphila, Lactobacillus et Bifidobacterium (P < 0,01 ou P < 0,001), A. muciniphila atteignant 0,84 ± 0,07. Parallèlement, les abondances relatives d'E. coli et de Desulfovibrio ont diminué à 1,68 ± 0,13 et 1,52 ± 0,08, respectivement (les deux P < 0,001 par rapport aux souris diabétiques ; Figure 4A–F).
Des altérations microbiennes spécifiques ont été corrélées à l'expression génique cardiaque et colique
Une analyse de corrélation de Spearman a été réalisée afin d'évaluer les associations entre les abondances relatives de taxons microbiens sélectionnés et les marqueurs d'expression génique dans les tissus cardiaques et coliques (Figure 5A). L'abondance relative d'A. muciniphila était négativement corrélée à l'ARNm cardiaque de Nlrp3 (R = −0,81, P = 0,0046) et à l'ARNm de Tnfa (R = −0,80, P = 0,0054). L'abondance relative d'E. coli était positivement corrélée à l'expression de l'ARNm d'Occludin dans le côlon (R = 0,66, P = 0,036 ; Figure 5B–D). Ces résultats ont révélé des associations entre certains taxons microbiens intestinaux et des marqueurs transcriptionnels cardiaques et coliques, sans toutefois établir de relations causales.
DISPONIBILITÉ DES DONNÉES :
Les jeux de données générés et/ou analysés au cours de la présente étude sont disponibles auprès de l'auteur correspondant sur demande raisonnable.
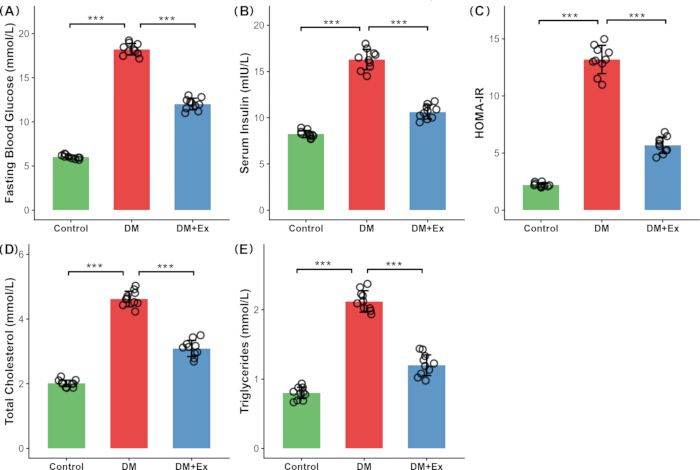
Figure 1 : Effets de l'exercice sur tapis roulant sur les paramètres métaboliques chez des souris diabétiques. (A) Glycémie à jeun. (B) Insuline sérique. (C) HOMA-IR. (D) Cholestérol total. (E) Triglycérides dans les groupes Témoin, DM et DM+Ex. Les données sont exprimées en moyenne ± ÉT (n = 10 par groupe), avec les points de données individuels superposés sur chaque barre. Les comparaisons entre groupes ont été effectuées par une ANOVA à un facteur suivie du test a posteriori de Tukey. *P < 0,05, **P < 0,01, ***P < 0,001 ; ns = non significatif. Abréviations : DM = modèle de diabète ; Ex = exercice ; HOMA-IR = évaluation du modèle homéostatique de la résistance à l'insuline ; ÉT = écart type. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
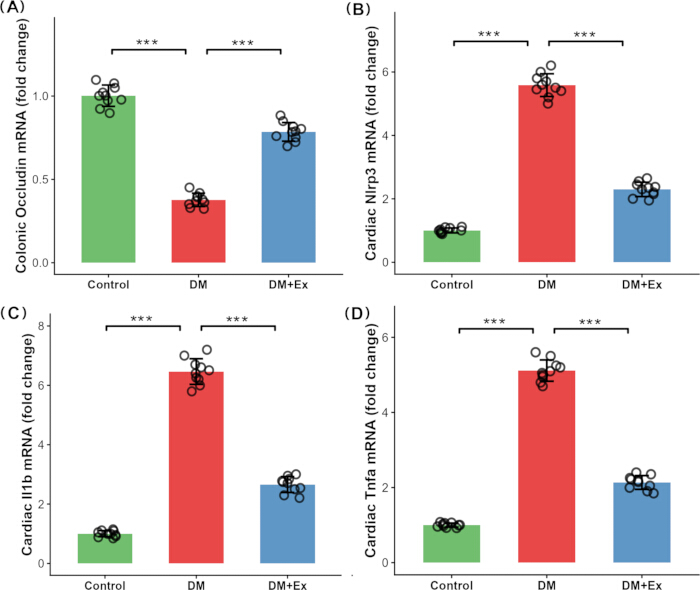
Figure 2 : Effets de l'exercice sur tapis roulant sur l'expression des gènes liés à la barrière intestinale et à l'inflammasome cardiaque chez des souris diabétiques. (A) Expression relative de l'ARNm de Occludin dans le côlon. (B) Expression relative de l'ARNm de Nlrp3 dans le cœur. (C) Expression relative de l'ARNm de Il1b dans le cœur. (D) Expression relative de l'ARNm de Tnfa dans le cœur. L'expression des gènes a été normalisée à Gapdh et exprimée en tant que variation d'expression par rapport au groupe témoin. Les données sont présentées comme moyenne ± ÉT (n = 10 par groupe). *P < 0,05, **P < 0,01, ***P < 0,001. Abréviations : IL-1β = interlukine-1β ; TNF-α = facteur de nécrose tumorale-α ; ÉT = écart type. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
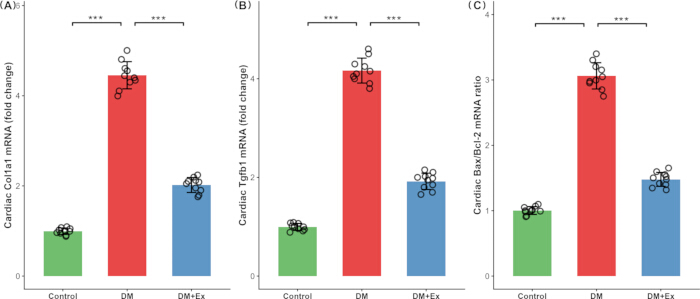
Figure 3 : Effets de l'exercice sur tapis roulant sur l'expression des gènes liés à la fibrose myocardique et à l'apoptose chez des souris diabétiques. (A) Expression relative de l'ARNm cardiaque de Col1a1. (B) Expression relative de l'ARNm cardiaque de Tgfb1. (C) Rapport d'ARNm Bax/Bcl2. L'expression des gènes a été normalisée à Gapdh et exprimée en tant que variation d'expression par rapport au groupe Témoin. Le rapport Bax/Bcl2 a été calculé à partir des valeurs d'expression relative d'ARNm. Les données sont présentées comme moyenne ± ÉT (n = 10 par groupe), avec les points de données individuels superposés à chaque barre. *P < 0,05, **P < 0,01, ***P < 0,001. Abréviations : Col1a1 = collagène de type I alpha 1 ; Tgfb1 = facteur de croissance transformant-β1 ; Bax = protéine associée à BCL2-X ; Bcl2 = lymphome des cellules B 2 ; ÉT = écart type. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
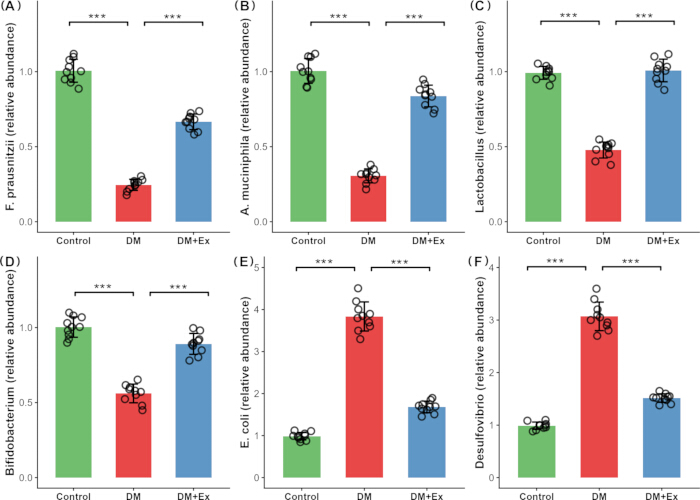
Figure 4 : Effets de l'exercice sur tapis roulant sur les abondances relatives de taxons microbiens intestinaux sélectionnés chez des souris diabétiques. (A) Faecalibacterium prausnitzii. (B) Akkermansia muciniphila. (C) Lactobacillus. (D) Bifidobacterium. (E) Escherichia coli. (F) Desulfovibrio. Les abondances relatives ont été déterminées par qPCR à l’aide de cibles spécifiques aux taxons dans l’ARNr 16S, par rapport à l’ARNr 16S bactérien total, puis normalisées par rapport au groupe témoin. Les données sont exprimées en moyenne ± écart-type (n = 10 par groupe). *P < ; 0,05, **P < ; 0,01, ***P < ; 0,001. Abréviation : SD = écart-type. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
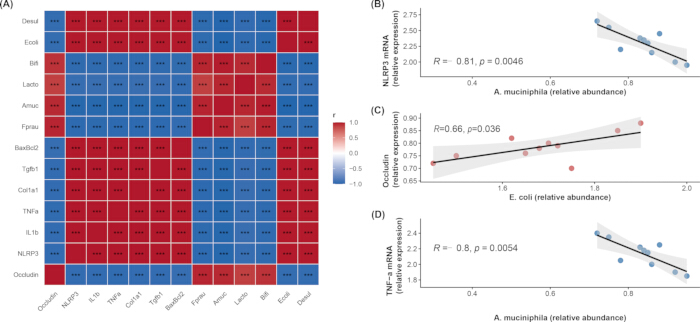
Figure 5 : Analyse de corrélation entre certains taxons microbiens intestinaux sélectionnés et les paramètres d'expression génique cardiaques et coliques. (A) Carte thermique montrant les coefficients de corrélation de Spearman entre certains taxons bactériens sélectionnés et les ARNm coliques d'Occludin, les ARNm cardiaques de Nlrp3, Il1b et Tnfa, les ARNm de Col1a1 et Tgfb1, ainsi que le ratio d'ARNm Bax/Bcl2. Les corrélations ont été calculées à partir des données des trois groupes (n = 30) sous forme de corrélations partielles de Spearman ajustées pour le groupe expérimental. L'échelle de couleurs varie du bleu pour les corrélations négatives au rouge pour les corrélations positives. Les astérisques à l'intérieur de la carte thermique indiquent la significativité après correction FDR (*P < 0,05, **P < 0,01, ***P < 0,001). (B) Corrélation entre l'abondance relative d'A. muciniphila et l'expression d'ARNm de Nlrp3 cardiaque dans le groupe DM+Ex. (C) Corrélation entre l'abondance relative d'E. coli et l'expression d'ARNm d'Occludin colique dans le groupe DM+Ex. (D) Corrélation entre l'abondance relative d'A. muciniphila et l'expression d'ARNm de Tnfa cardiaque dans le groupe DM+Ex. Chaque point représente une souris individuelle. Les droites de régression linéaire et les intervalles de confiance à 95 % sont indiqués à des fins de visualisation. Abréviations : DM = modèle de diabète ; Ex = exercice ; FDR = taux de faux positifs. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Gène/Microbe | Amorce sens | Amorce antisens |
| Tnfa | CCCTCACACTCAGATCATCTTCT | GCTACGACGTGGGCTACAG |
| Il1b | GCAACTGTTCCTGAACTCAACT | ATCTTTTGGGGTCCGTCAACT |
| Tgfb1 | CTCCCGTGGCTTCTAGTGC | GCCTTAGTTTGGACAGGATCTG |
| Col1a1 | GCTCCTCTTAGGGGCCACT | CCACGTCTCACCATTGGGG |
| Bax | AGACAGGGGCCTTTTTGCTAC | AATTCGCCGGAGACACTCG |
| Bcl2 | GCTACCGTCGTGACTTCGC | CCCCACCGAACTCAAAGAAGG |
| Nlrp3 | GTGAGCCCACACCACAGTTC | GACGTTCACCTCGCAGATGA |
| Gapdh | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| Bactéries totales (ARNr 16S) | ACTCCTACGGGAGGCAGCAG | ATTACCGCGGCTGCTGG |
| F. prausnitzii | GGAGGAAGAAGGTCTTCGG | AATTCCGCCTACCTCTGCACT |
| A. muciniphila | CAGCACGTGAAGGTGGGGAC | CCTTGCGGTTGGCTTCAGAT |
| Lactobacillus | AGCAGTAGGGAATCTTCCA | ATTYCACCGCTACACATG |
| Bifidobacterium | TCGCGTCCGGTGTGAAAG | CCACATCCAGCATCCAC |
| E. coli | AGGCCTTCGGGTTGTAAAGT | GTTAGCCGGTGCTTCTTCTG |
| Desulfovibrio | CCGTAGATATCTGGAGGAACATCAG | ACATCTAGCATCCATCGTTTACAGC |
Tableau 1 : Séquences des amorces utilisées pour la PCR quantitative en temps réel.
Discussion
Dans la présente étude, un modèle murin de diabète induit par un régime riche en matières grasses combiné à une faible dose de STZ a été utilisé pour évaluer les modifications métaboliques, intestinales, cardiaques et microbiennes associées à l'exercice. Huit semaines d'exercice sur tapis roulant ont été associées à une amélioration des paramètres métaboliques, à une expression accrue de l'ARNm d'Occludin dans le côlon, à une diminution de l'expression des gènes liés à l'inflammasome Nlrp3 cardiaque, ainsi qu'à une réduction de l'inflammation myocardique, de la fibrose et de l'expression des gènes liés à l'apoptose. L'exercice a également été associé à des modifications des abondances relatives de certains taxons microbiens intestinaux. Dans leur ensemble, ces résultats suggèrent que les modifications transcriptionnelles cardiaques liées à l'exercice pourraient être associées à des altérations de l'expression des gènes liés à la barrière intestinale et à certains taxons microbiens intestinaux, bien que la causalité n'ait pas été établie.
Comme prévu pour le modèle diabétique, les souris ont développé des troubles métaboliques marqués, incluant une hyperglycémie, une hyperinsulinémie, une résistance à l'insuline et une dyslipidémie, en accord avec le paradigme pathologique bien établi16,17. Le programme d'exercice de 8 semaines s'est associé à une réduction d'environ 34 % de la glycémie à jeun et de 57 % de l'indice HOMA-IR, indiquant une amélioration partielle de la résistance à l'insuline. Au niveau myocardique, l'exercice s'est associé à une diminution de 40 à 60 % de l'expression des marqueurs ARNm pro-inflammatoires (Tnfa, Il1b), profibrosants (Tgfb1, Col1a1) et liés à l'apoptose (Bax/Bcl2), ce qui est conforme à des études antérieures reliant l'exercice aérobie à l'activation de l'AMPK et à l'inhibition de NF-κB18,19. Toutefois, aucun de ces paramètres n'est revenu aux niveaux du groupe témoin, indiquant que l'intervention de 8 semaines était insuffisante pour normaliser le phénotype transcriptionnel associé au diabète établi, ce qui pourrait être lié à des effets persistants de mémoire glycémique20.
Colique Occludine L'expression des ARNm était d'environ 62 % plus faible chez les souris diabétiques, suggérant une réduction de l'expression des gènes liés à la barrière intestinale. Concomitamment, cardiaque Nlrp3, Il1b, et Tnfa L'expression des ARNm a augmenté respectivement de 5,6 fois, 6,5 fois et 5,1 fois. L'inflammasome NLRP3 est un capteur important du système immunitaire inné et est impliqué dans la pathologie cardiaque diabétique. L'hyperglycémie peut augmenter le myocarde Nlrp3 expression génique par l'intermédiaire des espèces réactives de l'oxygène (ERO) et des voies de la protéine interagissant avec la thiordoxine (TXNIP), avec des effets ultérieurs sur l'IL-1β- et la signalisation inflammatoire liée à l'IL-1821,22Une translocation systémique accrue du lipopolysaccharide (LPS), secondaire à la rupture de la barrière intestinale, a également été décrite comme un stimulus en amont de la préparation du NLRP3.23. Le LPS peut augmenter Nlrp3 et pro-Il1b expression par l'intermédiaire de la voie TLR4/MyD88/NF-κaxe de signalisation B, fournissant le premier signal nécessaire à l'initialisation de l'inflammasome24. Dans le modèle diabétique actuel, une abondance relative accrue d'E. coli a été observée, ainsi qu'une réduction du côlon Occludine Expression des ARNm et augmentation de l'expression des gènes cardiaques liés à l'inflammasome. Ces modifications parallèles sont compatibles avec une voie inflammatoire potentiellement associée à l'intestin, mais ne démontrent ni une translocation accrue du LPS ni un mécanisme causal entre l'intestin et le cœur.
L'intervention par l'exercice a été associée à une augmentation de l'expression de l'ARNm de Occludin colique jusqu'à environ 79 % de la valeur du témoin, tandis que l'expression cardiaque des ARNm de Nlrp3, Il1b et Tnfa a diminué respectivement à environ 2,3, 2,7 et 2,1 fois les valeurs témoins. Ces résultats indiquent une association entre une expression plus élevée des gènes liés à la barrière intestinale et une expression plus faible des gènes inflammatoires cardiaques après l'exercice. Des études antérieures ont suggéré que l'exercice pourrait soutenir la fonction de la barrière intestinale par une production accrue de mucus, une régulation des protéines des jonctions serrées et une perfusion intestinale améliorée25,26,27,28. Toutefois, les données actuelles se limitaient à des mesures d'ARNm et n'ont donc pas permis de confirmer ces mécanismes fonctionnels.
L'analyse ciblée de la microflore intestinale a montré que l'exercice était associé à un retournement partiel des modifications liées au diabète dans les abondances relatives de taxons sélectionnés, en particulier une augmentation d'A. muciniphila et une diminution d'E. coli. Ces variations inverses sont compatibles avec les associations précédemment décrites entre ces taxons et le maintien de la barrière intestinale ainsi que les processus liés aux endotoxines29,30,31. Toutefois, comme seuls certains taxons ont été quantifiés, ces résultats doivent être interprétés comme des modifications associées à l'exercice dans les abondances relatives de bactéries spécifiques, plutôt que comme une remodélisation complète de la microflore intestinale.
L'analyse de corrélation a en outre identifié des associations entre certains taxons microbiens sélectionnés et des marqueurs transcriptionnels. Au sein du groupe soumis à l'intervention d'exercice, l'abondance d'A. muciniphila était négativement corrélée à l'expression cardiaque des ARNm de Nlrp3 (R = −0,81, P = 0,0046) et de Tnfa (R = −0,80, P = 0,0054). En revanche, l'abondance d'E. coli était positivement corrélée à l'expression colique de l'ARNm d'Occludin (R = 0,66, P = 0,036 ; Figure 5C). L'association positive entre E. coli et l'ARNm d'Occludin allait à l'encontre de l'hypothèse initiale, indiquant que la relation entre certains taxons microbiens intestinaux sélectionnés et l'expression génique liée à la barrière intestinale ne pouvait pas être expliquée par un modèle linéaire simple. Ces corrélations étaient cohérentes avec les associations observées entre l'exercice, certains taxons microbiens et les marqueurs transcriptionnels de l'hôte, mais n'établissaient pas de lien de causalité. Des données antérieures montrant que l'épuisement d'A. muciniphila peut augmenter la perméabilité intestinale et l'endotoxémie métabolique32, ainsi que des preuves impliquant NLRP3 dans la pathologie cardiaque diabétique33, fournissent un contexte biologique à ces associations. Néanmoins, la présente étude n'a pas démontré directement que l'augmentation d'A. muciniphila améliorait la fonction de la barrière muqueuse, réduisait la translocation de LPS ou atténuait l'inflammation cardiaque médiée par TLR4/NLRP3.
Cette étude présentait plusieurs limites. Premièrement, une qPCR ciblée de l'ARNr 16S a été utilisée pour quantifier six taxons bactériens représentatifs plutôt qu'un séquençage des amplicons 16S ou un séquençage métagénomique. Par conséquent, une évaluation complète de la structure de la communauté microbienne intestinale et de sa capacité fonctionnelle n'a pas été réalisée, et les modifications plus larges de la communauté ou les voies fonctionnelles n'ont pas pu être évaluées. Les résultats ont donc été décrits comme des changements dans les abondances relatives de taxons sélectionnés plutôt que comme un remaniement de la microflore intestinale. Deuxièmement, les niveaux circulants de LPS, les concentrations plasmatiques d'AGCC et la perméabilité intestinale n'ont pas été mesurés directement, ce qui limite l'interprétation mécanistique. Troisièmement, l'étude reposait principalement sur des données d'expression d'ARNm. Aucune validation au niveau protéique ou fonctionnelle n'a été effectuée concernant l'intégrité de la barrière, l'activation de l'inflammasome, la fibrose et l'apoptose. En conséquence, les conclusions se sont limitées à des modifications transcriptionnelles et n'ont pas établi d'effets fonctionnels ou au niveau protéique. Quatrièmement, un seul régime d'intensité et de durée d'exercice a été examiné, ce qui limite les conclusions quant à une prescription d'exercice optimale pour les modifications transcriptionnelles cardiaques associées au diabète. Cinquièmement, seuls des souris mâles ont été étudiées, et les résultats pourraient ne pas être généralisables aux femelles. Sixièmement, l'absence d'un groupe témoin sain soumis à l'exercice a limité la capacité à distinguer les réponses spécifiques au diabète des effets physiologiques de l'exercice. Septièmement, aucune échocardiographie ni histopathologie cardiaque n'ont été réalisées ; par conséquent, le modèle a été décrit comme un modèle de souris diabétique plutôt que comme un modèle confirmé de cardiomyopathie diabétique, et toutes les observations cardiaques se sont limitées à des modifications transcriptionnelles. Enfin, certaines corrélations observées pourraient refléter une séparation entre groupes plutôt que des relations biologiques intra-groupe, bien qu'une analyse de corrélation partielle ajustée sur le groupe ait été utilisée pour atténuer cette préoccupation.
En résumé, huit semaines d'exercice sur tapis roulant ont été associées à une amélioration métabolique ainsi qu'à des modifications transcriptionnelles cardiaques et coliques chez des souris diabétiques. Ces modifications se sont produites parallèlement à des changements dans les abondances relatives de certaines taxons microbiens intestinaux sélectionnés, en particulier une augmentation d'A. muciniphila et une diminution d'E. coli. Les associations observées soutiennent la nécessité de recherches supplémentaires sur les relations entre l'exercice physique, certains taxons microbiens intestinaux, l'expression génique liée à la barrière intestinale et la transcription liée à l'inflammasome cardiaque. Des études futures intégrant un profilage plus large du microbiome, la quantification des AGCC, des tests de perméabilité intestinale et des validations au niveau protéique ou histologique seront nécessaires pour tester les mécanismes proposés et établir une causalité. Des études complémentaires d'intervention utilisant la transplantation de microbiote fécal, une supplémentation en A. muciniphila ou l'inhibition de NLRP3 seraient nécessaires pour déterminer si les associations observées reflètent des voies causales.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun intérêt financier concurrent ni aucune relation personnelle susceptible d’avoir influencé le travail rapporté dans cet article. Aucun outil d’intelligence artificielle n’a été utilisé pour la préparation de ce manuscrit ou des figures.
CONTRIBUTIONS DES AUTEURS :
H.H. et G.Z. ont conçu et planifié l'étude. H.H., G.Z. et Y.X. ont réalisé les expériences sur les animaux et le prélèvement des échantillons. H.H. et G.Z. ont effectué les expériences de biologie moléculaire et acquis les données. H.H. et Y.X. ont mené l'analyse statistique. H.H. a rédigé le manuscrit. H.W. a révisé de manière critique le manuscrit pour son contenu intellectuel important. Tous les auteurs ont lu et approuvé le manuscrit final.
Remerciements
Cette recherche n'a reçu aucune subvention spécifique des agences de financement des secteurs public, commercial ou à but non lucratif.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Glucomètre Accu-Chek et bandelettes réactives | Roche | Accu-Chek Active | Utilisé pour la mesure de la glycémie à jeun |
| Analyseur biochimique automatique | Hitachi | 7180 | Utilisé pour les mesures biochimiques sériques |
| Souris C57BL/6J (mâles, 8 semaines) | Beijing Vital River Laboratory Animal Technology Co., Ltd. | SCXK (Beijing) 2021-0006 | Animaux expérimentaux utilisés pour établir le modèle de souris diabétique |
| tampon citrate (0,1 mol/L, pH 4,5) | Sigma-Aldrich | C8532 | Utilisé pour la préparation de la solution de streptozotocine |
| Kits de dosage immunoenzymatique (ELISA) pour insuline murine | Wuhan HuaMei Biotech | CSB-E05070m | Utilisé pour la mesure de l'insuline sérique |
| Régime riche en graisses (60 % des kcal provenant des lipides) | Research Diets | D12492 | Utilisé pour l'induction et le maintien du modèle diabétique |
| Isoflurane | RWD Life Science | R510-22-10 | Utilisé pour l'anesthésie par inhalation |
| Microcentrifugeuse | Eppendorf | 5424 R | Utilisée pour la centrifugation des échantillons |
| Spectrophotomètre NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | Utilisé pour évaluer la concentration et la pureté de l'ARN |
| Paraformaldéhyde (4 %, dans du PBS) | Servicebio | G1101 | Utilisé pour la fixation des échantillons tissulaires |
| Solution saline tamponnée au phosphate (PBS) | Servicebio | G0002 | Utilisée pour le lavage et le rinçage des échantillons tissulaires |
| Power SYBR Green PCR Master Mix | Applied Biosystems (Thermo Fisher) | 4367659 | Utilisé pour la PCR quantitative en temps réel |
| Kits de réactifs PrimeScript RT (pour qPCR) | TaKaRa (Takara Bio) | RR037A | Utilisé pour la transcription inverse de l'ARN en ADN complémentaire |
| QIAamp Fast DNA Stool Mini Kit | Qiagen | 51604 | Utilisé pour l'extraction de l'ADN microbien à partir d'échantillons fécaux |
| Logiciel R | R Foundation | 4.2.0 | Utilisé pour l'analyse statistique |
| Système de PCR en temps réel (StepOnePlus) | Applied Biosystems (Thermo Fisher) | StepOnePlus | Utilisé pour l'amplification et la détection en temps réel par PCR quantitative |
| Streptozotocine (STZ) | Sigma-Aldrich | S0130 | Utilisée avec un régime riche en graisses pour induire le modèle de souris diabétique |
| Kits de dosage du cholestérol total (CT) | Nanjing Jiancheng Bioengineering Institute | A111-1 | Utilisé pour la mesure du cholestérol total sérique |
| Tapis roulant (motorisé, avec commande d'inclinaison) | Zhongshi Dichuang (Beijing) | ZS-PT-1 | Utilisé pour l'intervention par exercice sur tapis roulant |
| Kits de dosage des triglycérides (TG) | Nanjing Jiancheng Bioengineering Institute | A110-1 | Utilisé pour la mesure des triglycérides sériques |
| Réactif TRIzol | Invitrogen (Thermo Fisher) | 15596018 | Utilisé pour l'extraction totale de l'ARN à partir d'échantillons tissulaires |
Références
- Lu Y, et al. Vascular complications of diabetes: A narrative review. Medicine. 2023;102(40):e35285.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. International Journal of Molecular Sciences. 2022;23(7):3587.
- Abdullah AR, et al. A comprehensive review on diabetic cardiomyopathy (DCM): histological spectrum, diagnosis, pathogenesis, and management with conventional treatments and natural compounds. Naunyn-Schmiedeberg's Archives of Pharmacology. 2025;398(8):9929-9969.
- Hassooni FRH, et al. Advances in diabetic cardiomyopathy: current and potential management strategies and emerging biomarkers. Annals of Medicine and Surgery. 2025;87(1):224-233.
- Zhong L, et al. Exercise and dietary interventions in the management of diabetic cardiomyopathy: mechanisms and implications. Cardiovascular Diabetology. 2025;24(1):159.
- Ma X, et al. Beneficial effects of different types of exercise on diabetic cardiomyopathy. Biomolecules. 2025;15(9):1223.
- Liu Y, et al. Decoding the gut microbiota-immune dialogue: from bidirectional axis to therapeutic applications. Journal of Nanobiotechnology. 2026;24(1):469.
- Du L, et al. Lipopolysaccharides derived from gram-negative bacterial pool of human gut microbiota promote inflammation and obesity development. International Reviews of Immunology. 2022;41(1):45-56.
- Alhamar G, et al. Toll like receptor 4: A potential link between obesity and metabolic diseases. Obesity Reviews. 2026;16:e70107.
- Wu R, et al. Desulfovibrio vulgaris exacerbates sepsis by inducing inflammation and oxidative stress in multiple organs. Frontiers in Microbiology. 2025;16:1574998.
- Mohammadi K, Zhang D, Saris EJ. Strain-specific effects of Desulfovibrio on neurodegeneration and oxidative stress in a Caenorhabditis elegans PD model. npj Parkinson's Disease. 2025;11(1):236.
- Abbate A, et al. Interleukin-1 and the inflammasome as therapeutic targets in cardiovascular disease. Circulation Research. 2020;126(9):1260-1280.
- Chauhan R, et al. Decoding the gut microbiota-mitochondrial-inflammasome axis in cardiovascular disease. Molecular and Cellular Biochemistry. 2026;481(3):1081-1101.
- Yu C, et al. Exercise remodels Akkermansia-associated eicosanoid metabolism to alleviate intestinal senescence: Multi-omics insights. Microorganisms. 2025;13(6):1379.
- Zhang Y, et al. Enhancing intestinal barrier efficiency: A novel metabolic diseases therapy. Frontiers in Nutrition. 2023;10:1120168.
- Evangelista I, et al. Molecular dysfunction and phenotypic derangement in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2019;20(13):3264.
- Parim B, et al. Diabetic cardiomyopathy: molecular mechanisms, detrimental effects of conventional treatment, and beneficial effects of natural therapy. Heart Failure Reviews. 2019;24(2):279-299.
- Liu J, et al. The combination of exercise and metformin inhibits TGF-β1/Smad pathway to attenuate myocardial fibrosis in db/db mice by reducing NF-κB-mediated inflammatory response. Biomedicine & Pharmacotherapy. 2023;157:114080.
- Zhang X, et al. Exercise improves heart function after myocardial infarction: the merits of AMPK. Cardiovascular Drugs and Therapy. 2025;39(5):1153-1161.
- Berezin A. Metabolic memory phenomenon in diabetes mellitus: achieving and perspectives. Diabetes & Metabolic Syndrome: Clinical Research & Reviews. 2016;10(2):S176-S183.
- Date S, Bhatt LK. Exploring thioredoxin-interacting protein (TXNIP) as a therapeutic target for cardiovascular diseases. Archiv der Pharmazie. 2025;358(8):e70082.
- Zhang L, et al. NLRP3 inflammasome/pyroptosis: a key driving force in diabetic cardiomyopathy. International Journal of Molecular Sciences. 2022;23(18):10632.
- Tilg H, et al. The intestinal microbiota fuelling metabolic inflammation. Nature Reviews Immunology. 2020;20(1):40-54.
- Huang P, et al. TREM2 deficiency aggravates NLRP3 inflammasome activation and pyroptosis in MPTP-induced Parkinson's disease mice and LPS-induced BV2 cells. Molecular Neurobiology. 2024;61(5):2590-2605.
- Li T, et al. Six weeks of moderate-intensity treadmill exercise improves intestinal barrier and intestinal inflammation in Parkinson's disease mice. Molecular Neurobiology. 2025;62(8):10779-10791.
- He XQ, et al. Prevention of ulcerative colitis in mice by sweet tea (Lithocarpus litseifolius) via the regulation of gut microbiota and butyric-acid-mediated anti-inflammatory signaling. Nutrients. 2022;14(11):2208.
- Wang J, et al. Microbial short chain fatty acids: Effective histone deacetylase inhibitors in immune regulation. International Journal of Molecular Medicine. 2025;57(1):16.
- Deng F, et al. Intestinal ischemia/reperfusion injury: mechanisms, diagnosis, and therapeutic advances. International Journal of Biological Sciences. 2026;22(8):4059.
- Mo C, et al. The influence of Akkermansia muciniphila on intestinal barrier function. Gut Pathogens. 2024;16(1):41.
- Di Vincenzo F, et al. Gut microbiota, intestinal permeability, and systemic inflammation: a narrative review. Internal and Emergency Medicine. 2024;19(2):275-293.
- Birg A, Lin HC. The role of bacteria-derived hydrogen sulfide in multiple axes of disease. International Journal of Molecular Sciences. 2025;26(7):3340.
- Macchione IG, et al. Akkermansia muciniphila: key player in metabolic and gastrointestinal disorders. European Review for Medical and Pharmacological Sciences. 2019;23(18):8075-8083.
- Song S, et al. Sirtuin 3 deficiency exacerbates diabetic cardiomyopathy via necroptosis enhancement and NLRP3 activation. Acta Pharmacologica Sinica. 2021;42(2):230-241.