Cette étude décrit un protocole permettant de quantifier les amines biogènes dans les cerveaux de Drosophila à l'aide de la chromatographie en phase liquide à haute performance couplée à une détection électrochimique (HPLC-ECD). En exploitant la facilité génétique de Drosophila et la HPLC-ECD, cette approche peut aider les chercheurs à élucider les mécanismes moléculaires et génétiques sous-jacents aux modifications des amines biogènes dans les troubles cérébraux.
Article de méthode
Utilisation de la chromatographie en phase liquide à haute performance pour étudier les modifications des amines biogènes dans des modèles de troubles cérébraux chez Drosophila
* These authors contributed equally
Dans cet article
Résumé
Résumé
De nombreux troubles neuropsychiatriques et neurodégénératifs sont caractérisés par des perturbations des neurotransmetteurs cérébraux, notamment des altérations des concentrations des amines biogènes (AB) telles que la dopamine (DA) et la sérotonine (5-hydroxytryptamine ; 5-HT), ainsi que des modifications de leur libération ou de leur recapture. Ces changements neurochimiques sont corrélés à des phénotypes comportementaux clés distincts, tels que des déficits locomoteurs, une fragmentation du sommeil et des réponses au stress altérées, entre autres. Étant donné que les principaux systèmes d'amines biogènes interagissent, les modèles de maladies montrent fréquemment des modifications coordonnées affectant plusieurs amines plutôt que des changements isolés d'un seul neurotransmetteur. Par conséquent, une quantification précise et simultanée de plusieurs AB est essentielle pour interpréter les résultats comportementaux et génétiques. Drosophila melanogaster constitue un système génétiquement manipulable permettant de modéliser ces troubles et les modifications des neurotransmetteurs, mais les AB sont présentes dans le tissu cérébral de drosophile à des concentrations très faibles, allant du nanomolaire au femtomolaire, et la petite taille du système nerveux central de Drosophila rend leur détection techniquement difficile. Cette étude décrit un protocole permettant de détecter et de quantifier la DA, la 5-HT et l'octopamine dans les cerveaux de drosophiles à l'aide de la chromatographie liquide à haute performance couplée à une détection électrochimique (HPLC-ECD). L'HPLC-ECD a été utilisée pour détecter les modifications des concentrations cérébrales de DA et de 5-HT dans un modèle de drosophile de la maladie de Parkinson basé sur la surexpression dopaminergique de l'alpha-synucléine humaine. L'application de ce protocole au modèle de la maladie de Parkinson par l'alpha-synucléine révèle une augmentation significative de la dopamine, mais aucune modification de la sérotonine, par rapport aux témoins, ce qui est cohérent avec des mécanismes dopaminergiques compensatoires précoces. Cette approche fournit une méthode sensible, peu coûteuse et facilement accessible pour la quantification multiplexée des AB à partir de quantités limitées de tissu de Drosophila. Elle permet également le criblage systématique de modificateurs génétiques et de thérapeutiques candidates ciblant les voies monoaminergiques pertinentes pour les troubles cérébraux humains.
Introduction
Les neurotransmetteurs monoaminés, également appelés amines biogéniques (AB), sont connus pour réguler plusieurs caractéristiques neurologiques et comportementales clés chez les taxons animaux, notamment les états motivationnels, le sommeil, l'apprentissage, la mémoire et la régulation de l'humeur1,2,3,4. La dysrégulation des AB, comme la dopamine (DA) et la sérotonine (5-hydroxytryptamine ; 5-HT), constitue une caractéristique essentielle de troubles neurodégénératifs tels que la maladie de Parkinson, ainsi que de troubles psychiatriques comme la schizophrénie3,5. Toutefois, la relation entre la progression de la maladie et les changements neurochimiques spécifiques selon les régions cérébrales et les sous-types neuronaux n’a pas encore été entièrement élucidée. Répondre à de telles questions exige un système modèle qui soit non seulement génétiquement modifiable, mais également capable de reproduire des phénotypes physiologiques et comportementaux pertinents pour la maladie. Drosophila melanogaster s’est imposée comme un système modèle puissant à cet effet6,7. La drosophile possède des populations discrètes et bien caractérisées de neurones dopaminergiques et sérotoninergiques7,8, ainsi que des voies biosynthétiques, des transporteurs et des familles de récepteurs qui régulent ces systèmes et qui sont fonctionnellement conservés par rapport à leurs homologues mammaliens9. Une telle conservation fournit une base mécanistique permettant de transposer aux maladies humaines les découvertes neurochimiques obtenues chez la drosophile.
L'utilité des mouches pour modéliser les troubles neurologiques et psychiatriques va bien au-delà de l'homologie génétique. En tant que système génétiquement manipulable, les outils disponibles chez la drosophile permettent le criblage cellulaire spécifique de gènes et de voies, révélant ainsi des facteurs capables d'aggraver ou d'inverser des symptômes liés à la maladie, facilitant ainsi la découverte de nouvelles cibles thérapeutiques10. De plus, les systèmes d'expression binaires peuvent cibler non seulement des sous-types spécifiques de neurones monoaminergiques, mais aussi des fenêtres développementales précises11, offrant ainsi une précision spatiale et temporelle remarquable. Le système modèle de la drosophile fournit également un ensemble de comportements quantifiables pouvant être utilisés pour évaluer la reproduction de symptômes liés à la maladie ainsi que pour tester des stratégies d'intervention visant à corriger ces symptômes7. Par exemple, des modèles génétiques bien établis de la maladie de Parkinson chez la drosophile incluent des animaux porteurs de mutations perte-de-fonction de Pink1 et parkin, ainsi que des mouches surexprimant des versions sauvages ou mutées ponctuellement de l'α-synucléine humaine (α-syn), SNCA12,13,14. Tous ces modèles présentent certains des signes les plus importants de la maladie, notamment des déficits locomoteurs, une dégénérescence des neurones dopaminergiques, un dysfonctionnement mitochondrial et l'agrégation de l'α-syn chez les mouches portant la séquence humaine15,16,17,18,19. D'autre part, les perturbations du développement neuronal et une signalisation dopaminergique anormale sont également considérées comme des causes sous-jacentes de troubles tels que la schizophrénie20. En accord avec cela, Drosophila a été utilisée pour modéliser des symptômes proches de la schizophrénie, notamment l'hyperactivité, une modification de la réponse sensorielle et une diminution de l'excitation chez les mouches adultes21,22,23,24,25. Ensemble, ces modèles démontrent que Drosophila est capable de reproduire à la fois la progression des troubles neurodégénératifs et les origines développementales des troubles psychiatriques.
L'association entre les modifications comportementales observées dans les modèles génétiques et les changements neurochimiques nécessite des mesures quantitatives précises et reproductibles des amines biogènes (BAs). De plus, dans plusieurs maladies, la dysrégulation des monoamines ne se limite pas à un seul système de neurotransmetteurs. Chez les mouches mutantes Pink1B9, la teneur en sérotonine est réduite et l'activité du transporteur de sérotonine est altérée avant l'apparition de troubles moteurs26. Une intervention pharmacologique précoce visant à restaurer la signalisation sérotoninergique empêche la perte ultérieure des neurones dopaminergiques affectés chez les mouches mutantes Pink1B9. Les modifications sérotoninergiques peuvent donc précéder et contribuer de façon causale à la pathologie dopaminergique, une relation qui resterait indétectable par des évaluations comportementales ou par des mesures portant sur un seul analyte. De même, des modifications du système sérotoninergique sont observées dans des modèles de schizophrénie22,27,28. En outre, les principales amines biogènes chez Drosophila interagissent de manière partiellement redondante et partiellement antagoniste, de sorte que l'état d'un système ne reflète que très imparfaitement celui des autres29. Par conséquent, la quantification individuelle des amines biogènes dans ces modèles est essentielle.
Les amines biogènes sont des monoamines électrochimiquement actives (par exemple, les catécholamines, les indoléamines) présentes à des concentrations allant du nanomolaire bas au femtomolaire dans les tissus biologiques, ce qui rend leur détection simultanée techniquement exigeante30,31. La résolution de questions relatives aux bases génétiques et moléculaires des modifications des amines biogènes dans les maladies nécessite donc une méthode analytique capable de distinguer plusieurs amines structurellement proches. Cette méthode doit également permettre la détection de concentrations biologiquement pertinentes dans les petits volumes de tissu disponibles à partir de préparations du système nerveux central de Drosophila. La chromatographie liquide à haute performance (HPLC) couplée à une détection électrochimique (ECD) répond à ces exigences. La HPLC est une technique analytique qui permet de séparer différentes molécules au sein d’un échantillon en fonction de leurs caractéristiques physicochimiques. Le couplage du système chromatographique à un détecteur électrochimique permet une analyse rapide et très sensible d’analytes électrochimiquement actifs, tels que les amines biogènes. Les détecteurs électrochimiques fonctionnent en induisant une oxydation lorsque les analytes sortent de la colonne, transformant ainsi les interactions à la surface de l’électrode en un signal électrique quantifiable. D'autres techniques, comme la spectrométrie de masse, peuvent offrir une sélectivité et une sensibilité comparables32,33. Toutefois, le faible coût par échantillon et la fiabilité de la HPLC-ECD en font une méthode idéale pour la détection courante et accessible des amines biogènes dans les laboratoires de recherche en biologie. L’association de cette technique à la puissance de la génétique de Drosophila permet une analyse rapide et simple des bases génétiques et moléculaires des modifications des systèmes aminergiques.
Cette étude utilise un modèle génétique de Parkinson basé sur la surexpression de l’α-syn pour présenter un protocole permettant de déterminer les différences de teneur en BA dans des échantillons cérébraux de Drosophila. L'article décrit également comment cette approche peut être utilisée pour étudier la base moléculaire des troubles cérébraux.
Protocole
Les données brutes présentées dans ce travail sont disponibles à l'adresse suivante : https://doi.org/10.6084/m9.figshare.33868519.
Les réactifs et l'équipement utilisés sont listés dans le Tableau des matériaux.
1. Synchronisation et collecte des mouches
- Adapter les mouches d'intérêt à des cycles constants de 12 heures de lumière et 12 heures d'obscurité, à une température constante de 25 °C, pendant 3 jours avant le prélèvement. Pour s'assurer qu'un nombre suffisant de mouches est préparé par génotype/condition, adapter 3 à 9 réplicats biologiques de 5 mouches chacun.
- Le jour du prélèvement, placer des tubes de 1,5 mL sur de la glace sèche. Utiliser un tube par génotype/condition de mouche. À l’aide d’un entonnoir, verser directement les mouches dans les tubes afin de les congeler instantanément.
NOTE : Le prélèvement direct sur de la glace sèche permet de collecter les échantillons à différents moments de la journée sans les effets potentiellement nocifs de l’anesthésie. À ce stade, les échantillons peuvent être stockés indéfiniment à -80 °C ou être traités immédiatement. Prélever les groupes expérimentaux et témoins en même temps afin d’éviter tout effet perturbateur lié aux variations selon l’heure de la journée. Dans les résultats représentatifs actuels, les mouches ont été collectées 3 h après le passage à la lumière.
2. Dissection du cerveau et préparation des échantillons
- Pour préparer la dissection des tissus, utilisez un récipient plat, comme le couvercle d'une boîte de pointes de pipette, et remplissez-le de glace. Placez une boîte de Pétri de 30 mm par-dessus pour servir de plateforme de dissection. Effectuer la dissection sur de la glace, particulièrement lors de l'utilisation d'un stéréoscope avec un éclairage chaud, permet d'éviter la dégradation du tissu.
- Déposez une goutte de 200 µL de solution saline tamponnée au phosphate (PBS) 1x glacée dans la boîte et, sous un stéréoscope, disséquez chaque mouche à l'aide de pinces fines et pointues.
- Pour disséquer le cerveau, saisissez une mouche par l'abdomen à l'aide d'une paire de pinces et immergez-la dans la goutte de PBS. Sans lâcher la mouche, détachez la tête en saisissant la jonction entre la tête et le corps.
- Le corps et la tête flottent tous deux sur le PBS. Retirez le corps de la goutte et jetez-le. À l'aide d'une paire de pinces, saisissez la tête par le proboscis pour la repousser dans la goutte de PBS.
- À l'aide de l'autre paire de pinces, saisissez le bord de l'œil pour maintenir la tête en place, puis retirez le proboscis.
- Saisissez le tissu autour de l'ouverture créée par le retrait du proboscis et tirez. Le cerveau doit alors être exposé.
- Nettoyez délicatement le cerveau pour éliminer tout débris de la tête, car tout tissu résiduel pourrait affecter la quantification. De plus, prenez les mouches une par une depuis le tube placé sur de la glace sèche afin d'éviter la dégradation des échantillons.
- À l'aide d'une pointe de pipette, transférez un petit volume contenant le cerveau disséqué directement dans un tube contenant du PBS 1x glacé. Répétez cette étape jusqu'à obtenir un total de cinq cerveaux par réplicat biologique. Pour éviter que le cerveau n'adhère à la pointe de pipette, conditionnez-la au préalable avec la solution provenant de la plaque de dissection en aspirant et en expulsant plusieurs fois.
- Lorsque la dissection est terminée, effectuez une courte centrifugation de 10 s à 2 000 x g pour regrouper les cerveaux au fond du tube.
- Remplacez soigneusement le PBS 1x par 50 µL d'acide perchlorique (PCA) 0,2 N sur de la glace.
ATTENTION : le PCA est hautement corrosif. Préparez les aliquotes sous une hotte aspirante et utilisez des équipements de protection individuelle appropriés lors de la manipulation, notamment des lunettes de protection résistantes aux produits chimiques, des gants en néoprène épais et un tablier en caoutchouc.
REMARQUE : alternativement, les cerveaux peuvent également être directement collectés dans 50 µL d'acide perchlorique 0,2 N. Dans ce cas, utilisez une aiguille pour transférer les cerveaux afin d'éviter tout transfert indésirable de PBS. - Utilisez un homogénéisateur à ultrasons pour homogénéiser le tissu. Contrôlez l'amplitude afin d'éviter la production de chaleur. Ici, nous utilisons une fréquence de 10 kHz avec des cycles de courtes impulsions de 3 s suivies de 3 s sur glace.
- Centrifugez l'échantillon pendant 15 min à 15 000 x g et à 4 °C. Récupérez 40 µL du surnageant dans un nouveau tube conservé sur glace. Le maintien des échantillons dans le PCA empêche l'oxydation des acides benzoïques (BA). Évitez de récupérer du tissu lors de cette étape, car cela risquerait de boucher le système. Si du tissu est récupéré, des filtres à seringue peuvent être utilisés, mais le rendement en échantillon sera réduit.
- Juste avant l'injection des échantillons, ajoutez 8 µL d'acétate de sodium 1 M. Cela permet d'ajuster le pH de l'échantillon à une valeur proche du pH de la phase mobile (3,5), préservant ainsi la forme des pics lorsque l'échantillon traverse le détecteur. Les échantillons sont prêts à être injectés.
3. Préparation de la phase mobile
- Préparer 1 L de phase mobile citrate-acétate en ajoutant 870 mL d'eau ultrapure dans un flacon en verre.
- Ajouter 5,61 g d'acétate de sodium trihydraté et 8,79 g d'acide citrique anhydre dans le matériel en verre et mélanger jusqu'à dissolution complète. Vérifier que le pH est de 3,5 ; sinon, ajuster en conséquence.
- Dans une hotte, ajouter 130 mL de méthanol de qualité HPLC.
- Ajouter 130 mg d'octanesulfonate de sodium hydraté et mélanger soigneusement.
- Filtrer sous vide la solution à l'aide d'un 0.2 µm filtrer tout en agitant pendant 1 h. L'agitation permet au gaz piégé de s'échapper de la solution, et le vide facilite ce processus ainsi que la filtration.
- Placer la solution dans un bain ultrasons (42 kHz) pendant 30 min afin d'éliminer les bulles d'air.
- Envelopper le récipient dans du papier d'aluminium et étiqueter correctement.
REMARQUE : La qualité des réactifs influence grandement les temps de rétention. L'utilisation de réactifs de qualité HPLC permet de maintenir une cohérence entre les analyses. Utiliser les mêmes réactifs lors de la préparation à nouveau de la phase mobile préserve également la constance des résultats.
4. Préparation des étalons
- Pour préparer les étalons, peser individuellement 10 mg d’OA, de DA et de 5-HT sur du papier de pesée.
- Placer la quantité pesée dans des bouteilles en verre séparées de 125 mL afin de préparer des solutions mères individuelles. Repeser le papier vide afin de calculer la quantité exacte d’OA, de DA ou de 5-HT transférée dans les bouteilles.
- Calculer le volume de solvant à ajouter pour atteindre une concentration de 100 ng/µL de l’analyte. Si les 10 mg complets ont été ajoutés, utiliser 100 mL de solvant. Pour l’OA et la DA, utiliser de l’acide chlorhydrique 0,1 M comme solvant. Pour le 5-HT, utiliser à la place de l’acide acétique 0,1 M.
- Compléter les étalons avec du 2Na-EDTA jusqu’à une concentration finale de 1 mg/mL. Mélanger soigneusement jusqu’à dissolution complète. Envelopper la bouteille dans du papier d’aluminium pour la protéger de la lumière et la conserver à 4 °C.
NOTE : Les étalons peuvent être conservés jusqu’à 3 mois dans ces conditions.
5. Préparation des solutions d'étalonnage
REMARQUE : Pour établir une courbe d'étalonnage, préparez trois étalons contenant des BA mixtes à différentes concentrations. Dans cet exemple, nous utilisons des solutions de travail à 0,03 ng/µL, 0,01 ng/µL et 0,001 ng/µL. L'injection de 10 µL permet d'obtenir respectivement des quantités étalons de 0,3 ng, 0,1 ng et 0,01 ng.
- Commencez par préparer un mélange stock à 1 ng/µL en ajoutant 1 µL de chaque stock de BA à 100 ng/µL à 97 µL d'acide acétique 0,02 M contenant 1 mg/mL de 2Na-EDTA. Mélangez soigneusement.
- Prélèvez 2 µL du stock à 1 ng/µL et ajoutez-les à 64,6 µL d'acide acétique 0,02 M contenant 1 mg/mL de 2Na-EDTA. Mélangez soigneusement. Cette solution est la solution de travail à 0,03 ng/µL.
- Prélèvez 2 µL du stock à 1 ng/µL et ajoutez-les à 18 µL d'acide acétique 0,02 M contenant 1 mg/mL de 2Na-EDTA. Mélangez soigneusement. Cette solution est la solution de travail à 0,1 ng/µL. Cette solution n'est pas injectée dans ce protocole. Elle est uniquement utilisée pour les dilutions sérielles.
- Prélèvez 4 µL de la solution stock à 0,1 ng/µL et ajoutez-les à 36 µL d'acide acétique 0,02 M contenant 1 mg/mL de 2Na-EDTA. Mélangez soigneusement. Cette solution est la solution de travail à 0,01 ng/µL.
- Enfin, prélèvez 4 µL de la solution stock à 0,01 ng/µL et ajoutez-les à 36 µL d'acide acétique 0,02 M contenant 1 mg/mL de 2Na-EDTA. Mélangez soigneusement. Cette solution est la solution de travail à 0,001 ng/µL.
REMARQUE : Conservez ces étalons dans une boîte protégée de la lumière. Toutes les solutions étalons de travail doivent être préparées fraîchement.
6. Configuration et exécution de l'injection
REMARQUE : Tous les systèmes de chromatographie en phase liquide haute performance (CPL) fonctionnent selon les mêmes principes. Toutefois, les différences au niveau du matériel peuvent avoir une grande influence sur le temps de rétention et la durée de l'analyse. De plus, la sensibilité du détecteur électrochimique (DEC) entraînera des limites de détection différentes. Celles-ci devront être déterminées empiriquement. Cette étude a utilisé un système de chromatographie en phase liquide haute performance (CPL) équipé d'une colonne en phase inverse C18.
- Allumez l'équipement de chromatographie liquide à haute performance (HPLC), y compris la pompe et le détecteur électrochimique. Réglez le débit à 100 µL/min et laissez le détecteur électrochimique atteindre une ligne de base stable. Cela devrait prendre de 10 à 30 minutes.
- Lorsque les échantillons sont prêts à être injectés, réglez le débit à 500 µL/min. Laissez le système se stabiliser pendant 5 minutes. En attendant, rincez trois fois une seringue Hamilton de 20 µL avec de l’eau ultrapure.
- Aspirez 10 à 20 µL d’échantillon dans la seringue. Le volume dépendra de la capacité de la boucle d’échantillonnage. Reportez-vous au manuel de la boucle d’échantillonnage pour plus d’informations.
- Veillez à ce qu’il n’y ait aucune bulle d’air dans la seringue lors de l’injection. Tout gaz emprisonné perturberait le pompage correct de la phase mobile ou les mesures du détecteur électrochimique (ECD). S’il y a des bulles, retournez l’échantillon et tentez de recharger la seringue.
- Insérez complètement l’aiguille dans le port d’injection. Placez le levier en position « chargement » et injectez l’échantillon en poussant le piston de la seringue jusqu’à ce que tout le liquide ait quitté la seringue. Abaissez ensuite le levier de l’injecteur en position « injection ». L’analyse a commencé et, dans ces conditions, devrait se terminer en 30 à 35 minutes.
- S’il reste des échantillons à analyser, laissez le système fonctionner pendant 10 à 15 minutes à 500 µL/min avant d’injecter le suivant.
NOTE : Si des fluctuations constantes du signal ECD apparaissent, vérifiez les variations de pression du système. Un gaz emprisonné peut provoquer un débit irrégulier et un bruit de fond plus élevé que la normale. Purgez le système avec une solution fraîche à grande vitesse, en contournant le détecteur ECD, afin de résoudre ce problème.
7. Récupération et analyse des données
REMARQUE : Il existe plusieurs convertisseurs analogique-numérique et logiciels permettant de collecter et d'analyser ce type de données. Ils peuvent différer par la manière dont ils traitent les données ; toutefois, ils partagent des principes généraux. Cette étude a utilisé respectivement un logiciel de conversion de données et un logiciel d'acquisition et d'analyse de données de chromatographie.
- Les variations de courant/tension issues de l'oxydation des BA, capturées par le DCE, seront converties par le convertisseur analogique-numérique. La concentration des BA est proportionnelle à la variation de courant/tension.
- Utilisez la surface sous la courbe obtenue à partir des graphiques de courant en fonction du temps provenant des analyses standards des BA pour établir une courbe de calibration. Les valeurs seront représentées par une régression linéaire sur un graphique Courant/Tension (nA ou mV) en fonction de la Quantité (ng).
- À l'aide de l'équation linéaire, calculez la concentration des BA dans votre échantillon.
Résultats
Les composés biologiques sont oxydés à des tensions différentes. Dans une matrice complexe, comme les tissus cérébraux, le choix de la tension appropriée pour la détection par oxydation chimique (ECD) permet une quantification plus propre et plus précise. Ici, nous avons choisi deux tensions différentes afin de montrer l'impact de ce paramètre sur l'identification et la quantification de l'octopamine (OA), de la dopamine (DA) et de la sérotonine (5-HT) dans des échantillons de cerveau de Drosophila. En utilisant 950 mV, nous pouvons détecter facilement ces trois amines dans un mélange (Figure 1A), tandis que seule la dopamine et la sérotonine sont observées à 650 mV (Figure 1B). Ceci est cohérent avec les tensions d'oxydation de ces composés : 900–1000 mV pour l'OA, 600–700 mV pour la DA et la 5-HT. Les temps de rétention pour l'OA, la DA et la 5-HT sont respectivement de 6 min, 11 min et 29 min. La quantification de trois quantités différentes — 0,01 ng, 0,1 ng et 0,3 ng — donne des courbes de calibration comparables à 950 mV ou à 650 mV (Figure 1C,D, respectivement). Ces courbes démontrent la linéarité et la sensibilité du dosage pour chaque analyte sur la gamme de concentrations testée à chaque potentiel de détection.
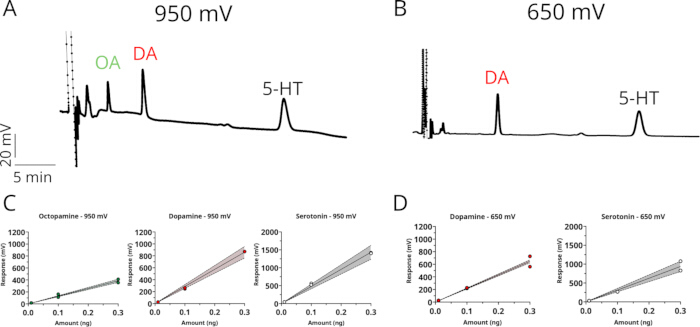
Figure 1 : Détection et quantification des amines biogéniques par CLHP-DEC à deux potentiels d'oxydation. (A,B) Chromatogrammes représentatifs illustrant la séparation des étalons d'octopamine (OA), de dopamine (DA) et de sérotonine (5-HT) détectés à un potentiel appliqué de (A) 950 mV ou de (B) 650 mV. Axe vertical : réponse (mV) ; axe horizontal : temps de rétention (5 min par graduation, indiqué par la barre d'échelle). (C,D) Courbes d'étalonnage pour chaque analyte à (C) 950 mV et à (D) 650 mV, représentant la réponse du pic (mV) en fonction des quantités étalons (ng ; 0,01–0,3 ng). Les lignes continues représentent les ajustements par régression linéaire, les bandes ombrées indiquent les intervalles de confiance à 95 %, et les cercles pleins/ouverts représentent deux injections individuelles d'étalons par concentration. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Les échantillons complexes, comme ceux provenant d'extraits cérébraux, sont généralement responsables d'un fond biologique important. En suivant le protocole décrit ici, nous avons cherché à déterminer l'effet de la tension appliquée à l'électrode sur la détection et la quantification des BA dans des échantillons cérébraux. Des mouches mâles adultes ont été collectées au moment de l'allumage de la lumière, après deux jours complets d'entraînement, et leurs cerveaux ont été disséqués dans du PBS glacé, puis placés dans du PCA 0,2 N sur glace. Après dissociation tissulaire et centrifugation, le surnageant a été équilibré avec de l'acétate de sodium 1 M, et 10 µL ont été injectés. En réglant le potentiel de l'électrode à 950 mV, on observe des pics correspondant à l'octopamine, à la dopamine et à la sérotonine aux temps de rétention respectifs (Figure 2A, trace noire). L'identité de ces composés a été confirmée par l'analyse d'un échantillon enrichi avec des quantités connues (0,01 ng chacune) de chaque BA (Figure 2A, trace rouge). Toutefois, plusieurs pics supplémentaires sont observés près des analytes d'intérêt, ce qui peut compliquer la quantification. Réglage du potentiel de l'électrode à 650 mV résout ce problème, mais au détriment de la détection de l'octopamine (Figure 2B). Comme dans la Figure 1, l'OA n'est pas séparée à 650 mV, ce qui est cohérent avec son potentiel d'oxydation plus élevé.
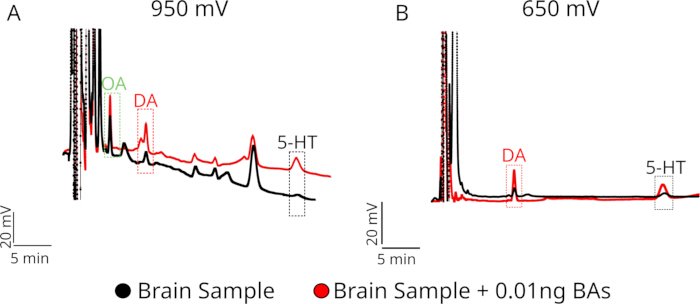
Figure 2 : Identification d'amines biogéniques endogènes dans des échantillons de cerveau par amplification des pics (ajout de standards) à deux potentiels d'oxydation. (A,B) Chromatogrammes représentatifs d'un extrait de tissu cérébral analysé par HPLC-ECD à un potentiel appliqué de (A) 950 mV ou (B) 650 mV, affichés avant (trace noire, « Échantillon de cerveau ») et après (trace rouge, « Échantillon de cerveau + 0,01 ng d'AB ») l'ajout d'une quantité connue (0,01 ng) de standards d'octopamine (OA), de dopamine (DA) et de sérotonine (5-HT). Les cadres en pointillés indiquent les fenêtres de temps de rétention pour chaque analyte. Axe vertical : réponse (20 mV, indiquée par l'échelle) ; axe horizontal : temps de rétention (5 min, indiqué par la barre d'échelle). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
En suivant le même protocole, nous avons utilisé la CLHP-DEC pour détecter les différences de teneur en amines biogènes dans les cerveaux de mouches exprimant l'α-synucléine dans les neurones dopaminergiques (TH-T2A-GAL4 > UAS-SNCA.J34), un modèle murin de la maladie de Parkinson. Des études antérieures utilisant un modèle de la maladie de Parkinson fondé sur des mutations du gène Pink1 ont révélé des différences dans les niveaux de dopamine chez des mouches âgées de seulement 0 à 3 jours35. Ici, des mouches âgées de 3 à 6 jours ont été utilisées pour comparer les niveaux de dopamine et de sérotonine. Les niveaux de dopamine étaient significativement élevés chez les mouches atteintes de la maladie de Parkinson par rapport aux mouches témoins (Figure 3A), tandis que les niveaux de sérotonine restaient inchangés (Figure 3B). L'augmentation des niveaux de dopamine aux stades précoces pourrait refléter des mécanismes compensatoires avant l'apparition des symptômes de la maladie de Parkinson dans ce modèle (examiné dans Blesa J et al.36).
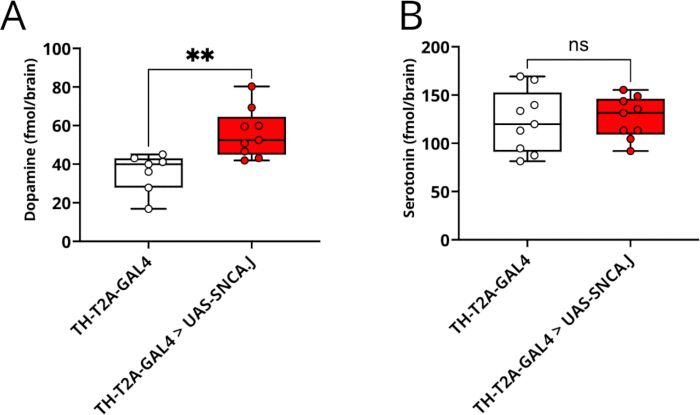
Figure 3 : Quantification des niveaux de dopamine et de sérotonine dans un modèle de Drosophila de la maladie de Parkinson par HPLC-ECD. Niveaux tissulaires de dopamine (A) et de sérotonine (B) dans l'encéphale entier, exprimés en fmol/cerveau, chez des mouches témoins (TH-T2A-GAL4, n = 7 en A et n = 9 en B) et chez des mouches modèles de la maladie de Parkinson (TH-T2A-GAL4 > UAS-SNCA.J, n = 9). Dans ce modèle, la séquence humaine d'α-synucléine optimisée au niveau des codons (SNCA.J) est surexprimée de manière sélective dans les neurones dopaminergiques sous le contrôle du promoteur TH-T2A-GAL4. Les données sont présentées sous forme de boîtes à moustaches (médiane, intervalle interquartile et minimum–maximum), superposées aux points de données individuels, chaque point représentant un prélèvement biologique (n) composé de 5 cerveaux regroupés. La significativité statistique a été déterminée par le test t non apparié (**p < 0,01, ns, non significatif). Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
Discussion
La chromatographie en phase liquide haute performance (HPLC) est une technique de séparation très personnalisable. En conséquence, de nombreuses étapes de ce protocole peuvent être modifiées. Des résultats fiables dépendent d'une attention minutieuse et d'une cohérence dans ces modifications. La polarité relative des phases stationnaire et mobile définit le mode de séparation : en phase normale, une phase stationnaire polaire est associée à une phase mobile non polaire, tandis qu’en phase inverse, une phase stationnaire non polaire est associée à une phase mobile polaire. L’analyse des amines biogéniques dans les tissus biologiques utilise généralement des conditions en phase inverse. Cette étude a utilisé une phase mobile à base de citrate-acétate avec du méthanol comme solvant principal ; toutefois, des mesures similaires ont été réalisées avec succès en utilisant un tampon phosphate avec de l’acétonitrile comme solvant22,26,35. Ainsi, la composition du tampon peut être ajustée selon la résolution et la forme des pics souhaitées. Une modification de la composition de la phase mobile modifierait probablement les temps d’élution37. Cela pourrait entraîner un chevauchement des pics, rendant la quantification difficile, voire impossible. Pour résoudre ce problème, les ajustements de pH constituent la solution la plus efficace, car l’interaction des analytes avec la colonne dépend fortement de leur pKa38.
Les amines peuvent subir une dégradation oxydative, donc la collecte et le traitement des tissus sont des points importants dans le protocole. La collecte des échantillons sur de la glace sèche et leur conservation à -80 °C jusqu'au traitement constituent une étape essentielle. Une fois disséqués, les échantillons doivent être homogénéisés rapidement en conditions acides. Cela empêche la décomposition des BA30,39,40. Dans ce contexte, d'autres acides peuvent être utiles si l'accès à l'ACP est limité. Une combinaison d'acide formique, un agent oxydant non explosif alternatif à l'ACP, et de méthanol pourrait également être utilisée pour l'extraction ; toutefois, nous n'avons pas testé cela sur des échantillons cérébraux de Drosophila41.
Le choix du détecteur détermine ce qui peut être mesuré et à quelle sensibilité ; les options courantes incluent les détecteurs UV/visible, de fluorescence et de spectrométrie de masse, chacun adapté à des propriétés spécifiques des analytes et à des exigences de sensibilité différentes. La détection électrochimique convient particulièrement bien aux catécholamines et aux indolamines telles que la DA et la 5-HT, qui s'oxydent directement à l'électrode de travail pour générer un courant proportionnel à leur concentration. La DCE a été décrite comme une technique plus simple et plus précise par rapport à d'autres méthodes de détection telles que la détection par fluorescence et la détection ultraviolette, qui nécessitent souvent davantage d'étapes avant l'analyse des échantillons, les rendant ainsi plus complexes ou plus longues42,43. L'HLPC-DCE offre une sensibilité exceptionnelle, pouvant détecter des analytes dans des échantillons biologiques à des concentrations de l'ordre du femtomolaire44. Étant donné qu'un seul cerveau de Drosophila fournit une quantité très faible de tissu, ce niveau de sensibilité est essentiel. De façon cruciale, l'HPLC-DCE permet également la quantification simultanée de plusieurs amines biogéniques à partir d'un seul échantillon, ce qui signifie que le profil complet des monoamines d'une préparation du système nerveux central de Drosophila peut être obtenu en une seule analyse.
La méthode présente des limites inhérentes qui définissent son champ d'application. Bien que cette méthode soit très sensible, la quantification des BA à partir d'échantillons de Drosophila nécessite la mise en commun de cerveaux. Ainsi, aucune détection individuelle par cerveau n’a été rapportée, comme c’est le cas avec d'autres approches45. Un autre inconvénient est l’encrassement des électrodes. L’encrassement peut survenir au fil du temps lorsque des sous-produits oxydatifs forment une fine couche isolante à la surface, ce qui affecte la sensibilité et provoque une dérive du signal46. Ce phénomène est particulièrement visible dans nos résultats lors de l’utilisation d’une tension d’oxydation plus élevée (Figure 2). Pour tenir compte de ces variations, il peut être utile de répéter des injections standards après quelques analyses. Des injections standards devraient également être répétées à chaque modification de la phase mobile ou du potentiel de détection afin de corriger tout décalage observé dans les pics. Un nettoyage périodique de l’électrode peut atténuer ce problème. Un autre inconvénient est que la HPLC-ECD fournit une mesure globale et statique de la teneur en amines intégrée sur l’ensemble du tissu analysé. Elle ne fournit aucune information sur la localisation des amines dans le cerveau, ni sur la contribution relative de populations neuronales spécifiques. Les composés non électroactifs tels que le GABA et le glutamate ne sont pas détectables dans des conditions standard de DCE et nécessitent des tests distincts. Plus important encore, la HPLC-ECD est une méthode ciblée. Elle ne peut pas être utilisée pour identifier des molécules inconnues pouvant être corrélées à un phénotype comportemental, car elle repose entièrement sur la comparaison des temps de rétention avec des étalons connus et bien caractérisés. Pour la découverte non ciblée de corrélats neurochimiques du comportement, des techniques telles que la LC-MS/MS seraient plus adaptées, bien que leur coût soit plus élevé.
Dans ces limites, la CLHP-DEC répond à un ensemble bien défini et biologiquement pertinent de questions dans les modèles d'altérations chez Drosophila . Elle permet de déterminer si un génotype ou un traitement modifie les concentrations stables des amines, et si ces modifications sont spécifiques à un seul système de neurotransmetteurs ou affectent plus largement le profil des monoamines. Elle permet également de suivre les variations neurochimiques au cours des stades de développement ou de la progression de la maladie, fournissant ainsi des preuves d'états biochimiques pré-symptomatiques qui précèdent des phénotypes comportementaux détectables47. Elle est également particulièrement adaptée pour évaluer si une intervention pharmacologique ou génétique normalise, dépasse ou échoue à corriger les déficits en amines dans un modèle donné26. Répondre à des questions telles que le moment où chaque amine évolue, le fait que la correction d'un système perturbe un autre, ou encore si une perturbation au cours du développement laisse une empreinte neurochimique durable, correspond précisément à l'objectif d'une méthode quantitative, sensible et multi-amine. Utilisée conjointement avec les tests comportementaux et les outils génétiques disponibles chez Drosophila, la CLHP-DEC apporte une couche biochimique quantitative qui élargit considérablement la portée interprétative de ces modèles d'altérations.
Déclarations de divulgation
Les auteurs déclarent ne pas avoir de conflits d'intérêts.
Remerciements
Ce travail a été financé par une subvention du National Institutes of Health R00NS133470 (S.H.). Le contenu est la seule responsabilité des auteurs et ne représente pas nécessairement les points de vue officiels du National Institutes of Health. R.V.Z. est soutenu par la Subvención a la Instalación en la Academia (SIA) n°85250142, et J.M.C. est soutenu par le FONDECYT 1231556, Agencia Nacional de Investigación y Desarrollo, Chili.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| (±) Chlorhydrate d'octopamine | Sigma Aldrich | 770-05-8 | |
| Unité filtrante de 500 mL | Thermo Scientific | FB12566504 | Membrane aPES 0,2 µm, diamètre 75 mm |
| Acide acétique, glacial | Fisher Scientific | 64-19-7 | |
| Acide citrique anhydre | USB | 77-92-9 | |
| Logiciel de chromatographie Clarity | Data Apex | Version 10.1 | |
| Convertisseur de données Colibrick | Data Apex | Convertisseur A/N | |
| Chlorhydrate de dopamine | Sigma Aldrich | 62-31-7 | |
| Pinces Dumont n°5 (Dumoxel Biology) | Fine Science Tools | 11252-30 | Pinces de dissection |
| EDTA, sel disodique, dihydraté, cristal (2Na-EDTA) | J.T Baker | 6381-92-6 | |
| EICOMPAK-5ODS | Eicom | 680.060.00 | Colonne de séparation en phase inverse |
| Eau ultrapure EMD Milipore Synergy UV-R (Type 1) | Milipore | ||
| Seringue Hamilton de 25 µL (22s/2"/3) | Hamilton | 80465 | |
| HTEC-600 | Eicom | Appareil HPLC | |
| Acide chlorhydrique | Sigma Aldrich | 7647-01-0 | |
| Papiers essuie-tout légers | VWR | 82003-820 | |
| Méthanol, grade HPLC | Fisher Scientific | 67-56-1 | Filtré 0,2 micron |
| Acide perchlorique, 70 % dans l’eau | Fisher Scientific | AC424032500 | À utiliser pour le PCA 0,2 N |
| Chlorhydrate de sérotonine 98 % | Fisher Scientific | 153-98-0 | |
| Octanesulfonate de sodium hydraté, grade HPLC, 99+% | Thermo Scientific | 5324-84-5 | |
| Acétate de sodium, trihydraté, cristal | J.T Baker | 6131-90-4 | |
| Nettoyeur ultrasonique Sonicator 1510 Bransonic | Branson | Modèle nº 1510R-MT | Sonicateur |
| Sonicateur processeur ultrasonique | Fisherbrand | Modèle FB50 | Avec sonde CL18 |
Références
- Barron AB, Søvik E, Cornish JL. The roles of dopamine and related compounds in reward-seeking behavior across animal phyla. Front Behav Neurosci. 2010;4:163.
- Cardozo Pinto DF, et al. Opponent control of reinforcement by striatal dopamine and serotonin. Nature. 2025;639(8053):143-152.
- Jiang Y, et al. Monoamine neurotransmitters control basic emotions and affect major depressive disorders. Pharmaceuticals (Basel). 2022;15(10):1203.
- Swallow JG, Bubak AN, Grace JL. The role of monoamines in modulating behavior. Curr Zool. 2016;62(3):253-255.
- Ramesh S, Arachchige ASPM. Depletion of dopamine in Parkinson's disease and relevant therapeutic options: A review of the literature. AIMS Neurosci. 2023;10(3):200-231.
- Elgueta-Reyes M, Hidalgo S, Campusano JM. Beyond vertebrates: Drosophila melanogaster as a model to study negative symptoms of schizophrenia. Front Psychiatry. 2025;16:1622281.
- Kasture AS, Hummel T, Sucic S, Freissmuth M. Big lessons from tiny flies: Drosophila melanogaster as a model to explore dysfunction of dopaminergic and serotonergic neurotransmitter systems. Int J Mol Sci. 2018;19(6):1788.
- Owald D, Lin S, Waddell S. Light, heat, action: Neural control of fruit fly behaviour. Philos Trans R Soc Lond B Biol Sci. 2015;370(1677):20140211.
- Rosikon KD, Bone MC, Lawal HO. Regulation and modulation of biogenic amine neurotransmission in Drosophila and Caenorhabditis elegans. Front Physiol. 2023;14:970405.
- Pandey UB, Nichols CD. Human disease models in Drosophila melanogaster and the role of the fly in therapeutic drug discovery. Pharmacol Rev. 2011;63(2):411-436.
- Duffy JB. GAL4 system in Drosophila: A fly geneticist's Swiss army knife. Genesis. 2002;34(1-2):1-15.
- Feany MB, Bender WW. A Drosophila model of Parkinson's disease. Nature. 2000;404(6776):394-398.
- Narwal S, Singh A, Tare M. Analysis of α-syn and parkin interaction in mediating neuronal death in Drosophila model of Parkinson's disease. Front Cell Neurosci. 2024;17:1295805.
- Park J, et al. Mitochondrial dysfunction in Drosophila PINK1 mutants is complemented by parkin. Nature. 2006;441(7097):1157-1161.
- Aryal B, Lee Y. Disease model organism for Parkinson disease: Drosophila melanogaster. BMB Rep. 2019;52(4):250-258.
- Clark IE, et al. Drosophila pink1 is required for mitochondrial function and interacts genetically with parkin. Nature. 2006;441(7097):1162-1166.
- Park S, Kozhushko N, Wight TH, Whitworth AJ. Insights into PINK1/Parkin function and dysfunction from Drosophila models. Biochem J. 2025;483(1):BCJ20253459.
- Mohite GM, et al. Parkinson's disease associated α-synuclein familial mutants promote dopaminergic neuronal death in Drosophila melanogaster. ACS Chem Neurosci. 2018;9(11):2628-2638.
- Ordonez DG, Lee MK, Feany MB. α-Synuclein induces mitochondrial dysfunction through spectrin and the actin cytoskeleton. Neuron. 2018;97(1):108-124.e6.
- Eyles D, Feldon J, Meyer U. Schizophrenia: Do all roads lead to dopamine or is this where they start? Evidence from two epidemiologically informed developmental rodent models. Transl Psychiatry. 2012;2(2):e81.
- Calcagno B, Eyles D, van Alphen B, van Swinderen B. Transient activation of dopaminergic neurons during development modulates visual responsiveness, locomotion and brain activity in a dopamine ontogeny model of schizophrenia. Transl Psychiatry. 2013;3(1):e206.
- Hidalgo S, et al. The behavioral and neurochemical characterization of a Drosophila dysbindin mutant supports the contribution of serotonin to schizophrenia negative symptoms. Neurochem Int. 2020;138:104753.
- Hidalgo S, Campusano JM, Hodge JJL. Assessing olfactory, memory, social and circadian phenotypes associated with schizophrenia in a genetic model based on Rim. Transl Psychiatry. 2021;11(1):292.
- Hidalgo S, Campusano JM, Hodge JJL. The Drosophila orthologs of the schizophrenia-associated CACNA1A and CACNA1B voltage-gated calcium channels regulate memory, sleep and circadian rhythms. Neurobiol Dis. 2021;155:105394.
- Shao L, et al. Schizophrenia susceptibility gene dysbindin regulates glutamatergic and dopaminergic functions via distinctive mechanisms in Drosophila. Proc Natl Acad Sci U S A. 2011;108(46):18831-18836.
- Zárate RV, et al. An early disturbance in serotonergic neurotransmission contributes to the onset of Parkinsonian phenotypes in Drosophila melanogaster. Cells. 2022;11(9):1544.
- Nakao K, et al. 5-HT2A receptor dysregulation in a schizophrenia relevant mouse model of NMDA receptor hypofunction. Transl Psychiatry. 2022;12(1):168.
- Zhou W, et al. DISC1 mutant macaques capture behavioral and neural hallmarks of psychiatric disease. Natl Sci Rev. 2026;13(8):nwag200.
- Chen A, et al. Dispensable, redundant, complementary, and cooperative roles of dopamine, octopamine, and serotonin in Drosophila melanogaster. Genetics. 2013;193(1):159-176.
- Plenis A, Olędzka I, Kowalski P, Miękus N, Bączek T. Recent trends in the quantification of biogenic amines in biofluids as biomarkers of various disorders: a review. J Clin Med. 2019;8(5):640.
- Fredj Z, Sawan M. Advanced nanomaterials-based electrochemical biosensors for catecholamines detection: challenges and trends. Biosensors (Basel). 2023;13(2):211.
- Hori A, Nitta T, Inamori Kichiro, Kanoh H, Kuraishi T. High-throughput single-fly LC-MS/MS for quantitative profiling of biogenic amines in Drosophila. PLoS One. 2026;21(1):e0341188.
- Davla S, et al. An LC-MS/MS method for simultaneous analysis of up to six monoamines from brain tissues. J Chromatogr B. 2023;1216:123604.
- Chouhan AK, et al. Uncoupling neuronal death and dysfunction in Drosophila models of neurodegenerative disease. Acta Neuropathol Commun. 2016;4(1):62.
- Molina-Mateo D, et al. Characterization of a presymptomatic stage in a Drosophila Parkinson's disease model: unveiling dopaminergic compensatory mechanisms. Biochim Biophys Acta Mol Basis Dis. 2017;1863(11):2882-2890.
- Blesa J, et al. Compensatory mechanisms in Parkinson's disease: circuits adaptations and role in disease modification. Exp Neurol. 2017;298(Pt B):148-161.
- Snyder LR, Quarry MA, Glajch JL. Solvent-strength selectivity in reversed-phase HPLC. Chromatographia. 1987;24(1):33-44.
- Lewis JA, et al. Computer simulation for the prediction of separation as a function of pH for reversed-phase high-performance liquid chromatography: I. Accuracy of a theory-based model. J Chromatogr A. 1992;592(1):183-195.
- Chan EC, Wee PY, Ho PC. Evaluation of degradation of urinary catecholamines and metanephrines and deconjugation of their sulfoconjugates using stability-indicating reversed-phase ion-pair HPLC with electrochemical detection. J Pharm Biomed Anal. 2000;22(3):515-526.
- Bicker J, Fortuna A, Alves G, Falcão A. Liquid chromatographic methods for the quantification of catecholamines and their metabolites in several biological samples: a review. Anal Chim Acta. 2013;768:12-34.
- Miękus N, et al. Comparison of three extraction approaches for the isolation of neurotransmitters from rat brain samples. Int J Mol Sci. 2018;19(6):1560.
- Van Dam D, Vermeiren Y, Aerts T, De Deyn PP. Novel and sensitive reversed-phase high-pressure liquid chromatography method with electrochemical detection for the simultaneous and fast determination of eight biogenic amines and metabolites in human brain tissue. J Chromatogr A. 2014;1353:28-39.
- Han S, et al. A sensitive HPLC-ECD method for detecting serotonin released by RBL-2H3 cells stimulated by potential allergens. Anal Methods. 2015;7(20):8918-8924.
- Guiard BP, Gotti G. The high-precision liquid chromatography with electrochemical detection (HPLC-ECD) for monoamines neurotransmitters and their metabolites: a review. Molecules. 2024;29(2):496.
- Fang H, Vickrey TL, Venton BJ. Analysis of biogenic amines in a single Drosophila larva brain by capillary electrophoresis with fast-scan cyclic voltammetry detection. Anal Chem. 2011;83(6):2258-2264.
- Hanssen BL, Siraj S, Wong DKY. Recent strategies to minimise fouling in electrochemical detection systems. Rev Anal Chem. 2016;35(1):1-28.
- Meissner WG. When does Parkinson's disease begin? From prodromal disease to motor signs. Rev Neurol (Paris). 2012;168(11):809-814.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible