Ce protocole permet l'isolement fiable de cardiomyocytes ventriculaires viables provenant du poisson-killie annuel à cycle de vie court, Nothobranchius furzeri, chez des groupes d'âge variés, produisant des cellules adaptées à des études par enregistrement en configuration tout-cellulaire afin d'analyser le remodelage cardiaque associé au vieillissement.
Article de méthode
Isolement de cardiomyocytes ventriculaires du poisson annuel tué Nothobranchius furzeri pour des enregistrements en configuration whole-cell par la technique de patch clamp
Dans cet article
Résumé
Résumé
Les cardiomyocytes isolés en travail restent la méthode standard pour l'étude de l'électrophysiologie cardiaque. Les préparations monocellulaires permettent une investigation directe et une mesure précise des courants ioniques et des potentiels d'action, sans la complexité structurelle du tissu cardiaque intact. Nothobranchius furzeri (killifish turquoise africain) s'est rapidement imposé comme un organisme modèle important pour la recherche en gériatrie en raison de sa durée de vie exceptionnellement courte et de la similitude de ses mécanismes de vieillissement avec ceux des mammifères, y compris l'humain. Cette espèce allie des avantages pratiques tels que sa petite taille, son élevage peu coûteux et son cycle de vie rapide à une pertinence translationnelle. N. furzeri présente un déclin lié à l'âge de l'activité locomotrice, des fonctions cognitives et de l'activité organique, une accumulation de marqueurs moléculaires du vieillissement, ainsi qu'une sensibilité aux traitements pharmacologiques modulant la durée de vie et la durée de bonne santé. Toutefois, l'étude du déclin fonctionnel du cœur vieillissant nécessite une méthode fiable permettant d'obtenir des cellules viables de haute qualité, adaptées aux techniques exigeantes d'analyse monocellulaire. Cette étude a optimisé un protocole précédemment décrit pour l'isolement de cardiomyocytes de Danio rerio, afin d'assurer une récupération constante de myocytes sains, tant chez les jeunes que chez les individus âgés de N. furzeri. Ce protocole décrit l'isolement de cardiomyocytes ventriculaires de N. furzeri, spécifiquement optimisé pour la technique du « patch clamp » en configuration cellule entière. L'article montre comment exciser efficacement le cœur, réaliser la dissociation enzymatique du myocarde par perfusion rétrograde et conserver les cardiomyocytes isolés. Nous discutons du choix des enzymes nécessaires pour digérer la matrice extracellulaire et les jonctions intercellulaires sans compromettre la structure des canaux ioniques. Les cardiomyocytes fraîchement isolés conviennent à des essais électrophysiologiques à haute résolution, notamment l'enregistrement des potentiels d'action et la mesure des principaux courants ioniques entrants et sortants chez différents groupes d'âge. L'article aborde également les particularités de l'isolement de cardiomyocytes chez les poissons, qui diffèrent des procédures standard d'isolement chez les mammifères.
Introduction
Le déclin fonctionnel du cœur dépendant de l'âge est provoqué par un remaniement structural, moléculaire et électrophysiologique, qui altère collectivement la réserve cardiaque et augmente la susceptibilité à l'arythmogenèse1. Pour comprendre les mécanismes responsables du vieillissement cardiaque au niveau cellulaire, la technique du patch-clamp en configuration whole-cell constitue un outil expérimental indispensable. Elle permet une évaluation directe et quantitative des courants ioniques transmembranaires individuels et de leurs cinétiques, ainsi que des potentiels d'action (PA), offrant ainsi un aperçu des modifications spécifiques des courants ioniques sous-jacentes au dysfonctionnement myocardique associé au vieillissement. L'étude de ces mécanismes nécessite des modèles vertébrés fiables de sénescence cardiaque. Ces dernières années, le killifish turquoise africain (Nothobranchius furzeri) s'est imposé comme un modèle prometteur pour l'étude du vieillissement cardiaque en raison de sa durée de vie naturellement courte2,3. Des études moléculaires et histologiques préliminaires ont révélé des similitudes dans les processus de vieillissement entre Nothobranchius et les mammifères. Des recherches menées par d'autres équipes ont établi que N. furzeri présente les caractéristiques essentielles du vieillissement cardiaque mammalien, notamment l'attrition des télomères, la diminution de la quantité d'ADN mitochondrial et de l'expression des enzymes antioxydantes, des altérations structurelles et électrophysiologiques du myocarde, ainsi que l'accumulation de marqueurs du vieillissement tels que la lipofuscine et une activité accrue de la β-galactosidase4,5,6.
Cependant, malgré l'importance croissante de N. furzeri dans la recherche cardiovasculaire, la caractérisation électrophysiologique détaillée au niveau cellulaire unique est limitée par des défis techniques persistants. L'obtention d'enregistrements de type « patch clamp » de haute qualité dépend strictement de l'isolement de cardiomyocytes fonctionnels conservant une intégrité structurelle, des canaux ioniques intacts et une morphologie non hypercontractée. Bien que les protocoles de dissociation enzymatique des cardiomyocytes de mammifères soient bien établis, l'isolement de myocytes cardiaques viables à partir de cœurs de poissons reste difficile en raison de l'architecture tissulaire non-mammalienne, du rendement cellulaire relativement faible et de la petite taille du cœur7,8. Les principales limitations de cette procédure tiennent à la difficulté technique de la canulation correcte du cœur et à la sensibilité de la préparation à de légères variations du traitement enzymatique. Toute perturbation du flux de perfusion entraîne une détérioration marquée de la qualité et du rendement cellulaire. De plus, même de légères variations de la concentration enzymatique ou du temps de digestion peuvent affecter considérablement la viabilité cellulaire et la qualité des enregistrements électrophysiologiques ultérieurs. L'âge de l'animal doit également être pris en compte. Bien que les cœurs de poissons âgés nécessitent des concentrations enzymatiques légèrement plus élevées et des durées de digestion prolongées en raison de leur teneur accrue en fibres de collagène et en fibroblastes2, les principes généraux de l'isolement restent constants, les concentrations enzymatiques et les durées d'exposition variant de 10 % pour obtenir des résultats optimaux.
Par conséquent, un protocole détaillé et hautement reproductible d'isolement enzymatique est une condition préalable indispensable pour faire progresser la recherche en électrophysiologie sur le vieillissement cardiaque chez les modèles de poissons. Malgré certaines similitudes morphologiques en dimensions linéaires, l'isolement des cardiomyocytes chez N. furzeri nécessite plusieurs modifications importantes par rapport au protocole utilisé chez Danio rerio. La procédure classique d'isolement des cellules à partir du cœur de poisson-zèbre consiste à immerger le cœur intact dans une solution enzymatique pendant une période relativement longue7,8,9. Bien que cette approche permette d'obtenir des cellules viables, elle peut s'avérer trop agressive pour le cœur de Nothobranchius et entraîner une digestion enzymatique excessive. Cette méthode assure un flux stable de solutions directement dans les cavités cardiaques, permettant ainsi un lavage plus efficace du sang contenu dans le cœur et rendant le traitement enzymatique plus précis et plus doux. Cet article décrit une méthodologie perfectionnée permettant d'isoler des myocytes cardiaques viables, adaptés aux enregistrements en mode « patch clamp », à partir de N. furzeri, en précisant les ajustements essentiels nécessaires pour garantir des enregistrements électrophysiologiques de haute qualité.
Protocole
L'étude a été réalisée sur des N. furzeri de la souche GRZ. Des poissons jeunes, sexuellement matures, des deux sexes, âgés de 1,5 à 2 mois (N = 19, masse corporelle = 0,71 g ± 0,36 g), ont été utilisés pour enregistrer les potentiels d'action et les courants ioniques dans des cardiomyocytes ventriculaires isolés. Les poissons ont été élevés et fournis par l'Institut d'écologie et d'évolution A.N. Severtsov de l'Académie des sciences de Russie. Les animaux ont été maintenus en aquarium à 24 °C ± 1 °C, selon un cycle lumière/obscurité de 12 heures, dans des réservoirs de 60 à 100 L. La densité animale était de 10 à 20 individus par réservoir, conformément aux recommandations publiées précédemment10.
Le principe de l'isolement des cardiomyocytes à partir de N. furzeri repose sur la méthode classique d'isolement chez les poissons décrite précédemment et adaptée aux petits poissons11,12. Toutes les expériences ont été réalisées conformément au Guide pour le soin et l'utilisation des animaux de laboratoire (Instituts nationaux de santé des États-Unis) et à la directive européenne 2010/63/UE. Le protocole expérimental a été approuvé par le Comité de bioéthique de l'Université d'État Lomonossov de Moscou (Demande №202-a, approuvée lors de la réunion de la Commission de bioéthique №169-d tenue le 27.02.2025). Les réactifs et l'équipement utilisés sont listés dans le Tableau du matériel.
1. Préparation des solutions
- Préparer la solution d'isolement sans Ca2+ contenant (en mmol L-1) : 100 NaCl, 10 KCl, 1,2 KH2PO4, 4 MgSO4, 50 taurine, 20 glucose et 10 HEPES. Ajuster le pH à 6,9 à l’aide de NaOH à température ambiante (24 °C). Réaliser l’isolement en utilisant une solution saline à température ambiante. L’oxygénation de la solution n’est pas nécessaire pendant l’isolement.
NOTE : La solution d’isolement peut être conservée à 4 °C pendant 3 à 4 jours dans un flacon en verre. - Préparer 3 mL de solution enzymatique à base de la solution sans Ca2+, contenant 0,8 mg mL-1 de collagénase de type 1A, 0,5 mg mL-1 de trypsine et 0,8 mg mL-1 d’albumine sérique bovine (BSA). Ajouter les enzymes juste avant la procédure d’isolement afin de préserver leur activité enzymatique.
NOTE : Les concentrations d’enzymes peuvent nécessiter un ajustement, car l’activité enzymatique varie d’un lot à l’autre. - Pré-refroidir 50 à 100 mL d’eau du robinet au réfrigérateur à +4 °C. Cette eau froide est nécessaire pour l’analgésie des poissons.
2. Préparation du système d'isolement
- Fixer deux cylindres de seringue de 10 mL à un support à une hauteur d'environ 35 cm.
- Relier des tubes en silicone (d = 8 mm) aux cylindres et joindre leurs extrémités libres à l’aide d’un robinet d’infusion à trois voies.
- Remplir un tube avec la solution d’isolement sans Ca2+ et l’autre avec la solution enzymatique. Veiller à ce qu’il n’y ait aucune bulle d’air dans les tubes, car elles entravent l’écoulement et réduisent la qualité de l’isolement. Arrêter l’écoulement.
- Remplir une aiguille de distribution de 32 G avec la solution sans Ca2+ à l’aide d’une seringue d’insuline de 1 mL afin d’éviter la formation de bulles d’air au niveau de la pointe de l’aiguille.
- Fixer l’aiguille remplie à l’extrémité libre du robinet à trois voies.
- À l’aide de pâte de fixation, fixer l’aiguille parallèlement au plan du fond d’une boîte de Pétri de 100 mm.
- Placer la boîte de Pétri raccordée au système de perfusion sous le microscope stéréo et la fixer à l’aide des pinces de plateau et de la pâte de fixation (Figure 1A).
3. Dissection et isolement du cœur
- Préparer les instruments chirurgicaux : deux paires de ciseaux et de forceps ophtalmiques microchirurgicaux, ainsi qu'un plateau de dissection équipé de quatre aiguilles médicales.
- Prendre l'eau du robinet prérefroidie sortant du réfrigérateur et immerger rapidement le poisson. Attendre que les opercules cessent de bouger.
ATTENTION : Confirmez l'arrêt du mouvement operculaire afin de garantir une analgésie adéquate avant de poursuivre. - Retirer le poisson de l'eau, le placer sur le plateau de dissection avec le côté dorsal vers le haut, puis sectionner la moelle épinière à l'aide de ciseaux ophtalmiques.
- Tournez le poisson sur le dos et fixez-le sur le plateau à l’aide d’aiguilles. Épinglez la tête, la queue et les opercules, en maintenant les opercules épinglés vers l’arrière dans une position complètement ouverte afin de gagner plus d’espace.
- Faire une incision transversale du péritoine. Prolonger l'incision longitudinalement selon l'axe principal du corps, en soulevant délicatement la peau des organes viscéraux à l'aide de pinces. Poursuivre jusqu'au bord de la mâchoire inférieure et fixer les bords cutanés à gauche et à droite (Figure 1B).
- Localisez le ventricule et le bulbe artériel. Saisissez le bulbe artériel avec une pince aussi loin que possible du ventricule et soulevez-le doucement hors du corps. Sans relâcher la pince, sectionnez en position caudale par rapport au ventricule afin de le maintenir intact.
- Transférer le cœur isolé dans la boîte de Pétri sous le microscope stéréoscopique. Fixer l'extrémité de la canule dans le ventricule en l'insérant d'abord dans le bulbe artériel, puis en la faisant passer délicatement à travers la valve aortique sans endommager les tissus environnants. Une canulation réussie peut être obtenue dans > 90 % des cœurs.
- Fixer le bulbe artériel à la canule à l'aide d'un ligature (Figure 1C).
REMARQUE : Un cheveu humain (d = 50–70 µm) convient bien comme ligature, car le fil de suture standard est trop épais pour le petit cœur.
4. Isolement des cardiomyocytes
- Ouvrir le robinet en T pour permettre l'écoulement de la solution dépourvue de Ca2+. Lorsque l'opération est correctement réalisée, le ventricule se remplit de solution et se dilate. Le débit est réglé à 43 µL min-1.
- Retirer les restes de l'oreillette et du sinus veineux à l’aide de ciseaux microchirurgicaux, sans endommager les parois du ventricule.
- Perfuser le cœur pendant 10 à 12 minutes tout en surveillant un écoulement uniforme. Comprimer doucement le tube en silicone pour délivrer une impulsion transitoire de solution qui dilate les trabécules ventriculaires et élimine le sang résiduel. Une perfusion réussie est indiquée par un arrêt cardiaque et la cessation de l’écoulement des érythrocytes observée au microscope stéréo.
- Changer la position du robinet en T afin d’acheminer la solution enzymatique vers le ventricule. Perfusion pendant 4 à 6 minutes. Vérifier visuellement l’effet du traitement enzymatique par la rupture de l’intégrité de la paroi ventriculaire et l’élimination de petits fragments myocardiques.
ATTENTION : Éviter de prélever ou de transférer le liquide de perfusion vers un microscope inversé pour examen, car cela pourrait entraîner une perte ou des dommages mécaniques aux éléments cellulaires et interrompre la surveillance continue de la qualité de la perfusion. Il est préférable de s’appuyer sur les signes d’isolement réussis décrits ci-dessus, clairement visibles au microscope binoculaire. - Ajouter une petite aliquote (300–400 µL) de solution dépourvue de Ca2+ dans une boîte de culture tissulaire de 35 mm. Détacher le ventricule du bulbe artériel et le transférer dans la boîte.
- Fragmenter le ventricule à l’aide de ciseaux fins, puis triturer doucement le tissu en pipetant répétitivement avec une micropipette de 100 µL équipée d’une pointe coupée.
- Transférer la suspension cellulaire dans un tube de 1500 µL. Examiner une aliquote au microscope inversé à faible grossissement (10×). Estimer visuellement la densité des cardiomyocytes en forme de bâtonnets striés dans le champ observé. Si le champ est trop chargé, avec de nombreux bâtonnets superposés (>50 par champ 10×), ajouter de la solution dépourvue de Ca2⁺ pour réduire la densité cellulaire et éviter un encombrement excessif dans la chambre d’enregistrement. Laisser les cellules se déposer à 4 °C pendant 40 à 50 minutes avant l’enregistrement.
REMARQUE : Les cellules peuvent être conservées à 4 °C pendant la phase de sédimentation ; les utiliser pour les enregistrements dans les 8 heures suivant l’isolement.
5. Enregistrements en configuration tout-cellule par la technique de scellement de membrane
- Préparez les solutions extracellulaire et intracellulaire pour les différents courants ioniques et enregistrements de potentiels d'action listés dans Tableau 1.
- Formez des pipettes de patch à partir de capillaires en verre borosilicaté à paroi mince (sans filament) à l’aide d’un tireur vertical et remplissez-les avec la solution intracellulaire. La résistance de la pipette remplie doit être comprise entre 2,0 et 3,0 MΩ pour toutes les configurations d’enregistrement.
- Remplissez le réservoir de perfusion avec la solution bain extracellulaire et purgez les lignes pour éliminer toutes les bulles d’air avant de placer les cellules dans la chambre d’enregistrement.
- Ajoutez un petit volume (30–40 µL) de la suspension de cardiomyocytes isolés dans la chambre d’enregistrement à fond en verre et laissez les cellules se déposer pendant 5 à 10 minutes.
- Fixez la pipette à l’étage amplificateur. Sous contrôle microscopique, abaissez la pipette vers le cardiomyocyte cible à l’aide du micromanipulateur jusqu’à ce que la pointe entre en contact avec la membrane, observé par un léger affaissement et une augmentation de la résistance de la pipette.
- Appliquez une aspiration négative douce pour établir un scellement de haute résistance (GΩ), qui se forme généralement en quelques secondes.
- Réglez le potentiel de maintien à -80 mV. Rupturez la membrane à l’aide d’une série d’impulsions d’aspiration brèves. Après avoir établi la configuration tout-cellule, minimisez les transitoires capacitifs et compensez la capacité cellulaire et la résistance série (d’accès) à l’aide du circuit de compensation de l’amplificateur.
- Compensez ces courants capacitifs à l’aide des commandes Capacité cellulaire et Résistance série de l’amplificateur. Réglez la commande Capacité cellulaire pour minimiser le transitoire capacitif principal, puis ajustez la commande Résistance série pour réduire le dépassement résiduel jusqu’à ce qu’il soit largement annulé, et que le courant de base soit plat.
- N’acceptez que les cellules dont la résistance d’accès estimée après compensation est inférieure ou égale à 10–12 MΩ pour l’enregistrement des potentiels d’action et des courants ioniques. Passez ensuite à l’enregistrement des potentiels d’action ou des courants ioniques, en ajoutant les bloqueurs spécifiques listés dans Tableau 2 avant l’enregistrement, si nécessaire.
- Effectuez les enregistrements à l’aide d’un logiciel d’acquisition en mode patch-clamp permettant de configurer des protocoles de stimulation personnalisés pour chaque courant cible. Les protocoles en mode blocage de tension utilisés dans cette étude sont illustrés dans Figure 2.
Résultats
Ce protocole permet d'obtenir des cardiomyocytes ventriculaires individuels, de forme allongée, provenant de N. furzeri, adaptés à l'enregistrement par électrode de patch en configuration tout-cellule à haute résolution. Une isolation réussie est d'abord évaluée par la morphologie cellulaire et la qualité du scellement, puis confirmée fonctionnellement par la capacité à enregistrer des potentiels d'action stables ainsi que chacun des principaux courants ioniques, avec la dépendance en tension et l'amplitude attendues. Les enregistrements représentatifs ci-dessous ont été obtenus à partir de jeunes N. furzeri et définissent les valeurs de référence indiquant une cellule saine et correctement scellée. Les écarts par rapport à ces critères indiquent généralement une isolation sous-optimale et sont décrits pour chaque critère.
Morphologie cellulaire et formation du scellement
Les cardiomyocytes ventriculaires viables de N. furzeri présentent une forme allongée et en bâtonnet, avec un sarcolemme lisse et morphologiquement intact (Figure 3). Chez certaines cellules, une faible striation transversale pouvait être observée au microscope optique, bien qu'elle ne soit pas systématiquement visible dans toutes les cellules ; par conséquent, le critère principal de sélection des cellules pour l'enregistrement reposait sur la présence d'une membrane lisse et intacte ainsi qu'une morphologie allongée en forme de bâtonnet. De telles cellules forment facilement un scellement de haute résistance (>1 GΩ) et supportent la rupture de la membrane. En revanche, les cellules arrondies, contractées, granuleuses ou gonflées indiquent une sur-digestion ou un dommage mécanique : elles scellent mal, se dégradent rapidement et doivent être écartées. Une cellule saine maintient un potentiel de membrane de repos stable et présente une fuite minimale au potentiel de maintien de -80 mV.
Caractéristiques de l'enregistrement par électrode à patch
Des enregistrements en configuration tout-cellule par la technique de « patch-clamp » ont été réalisés à 22–24 °C à l’aide d’un amplificateur de « patch-clamp ». Les signaux ont été échantillonnés à 10 kHz et filtrés passe-bas à 1–2 kHz. Le gain de sortie (α) a été réglé à ×0,5 afin d’optimiser la résolution du signal sur le convertisseur analogique-numérique. La résistance en série a été compensée de 70 % à 80 % ; délai de 10 µs. Les enregistrements ont été rejetés si la résistance d’accès estimée dépassait 10–12 MΩ ou variait de plus de ~10 % pendant l’enregistrement. Pour les enregistrements de potentiels d’action et de courants ioniques, une soustraction linéaire des fuites n’a pas été appliquée.
Les cellules ont été exclues de l'analyse si elles répondaient à l'un des critères suivants : potentiel de membrane au repos moins négatif que −70 mV en mode d'enregistrement en courant bloqué ; impossibilité de former un scellement gigaseal stable (>1 GΩ) ; résistance d'accès >10–12 MΩ après compensation ; diminution rapide des courants ioniques au cours de l'enregistrement ; dommages morphologiques (aspect arrondi, granuleux ou hypercontracté).
Potentiels d'action (contrôle positif de viabilité)
Les potentiels d'action enregistrés en mode courant bloqué fournissent l'évaluation la plus directe de la viabilité électrique d'un cardiomyocyte isolé. Évoquez les PA à l'aide d'impulsions de courant dépolarisantes de 1 ms (0,4–1 nA, environ 30 % au-dessus du seuil). Réglez la fréquence de stimulation à 0,3 Hz. Enregistrez les PA après environ 5 min, une fois que la forme d'onde a atteint un état stable et permanent. Chez un cardiomyocyte bien isolé provenant d'un N. furzeri jeune, le potentiel de membrane au repos (PMR) est stable et proche de -85 mV (Figure 4B). Le PA atteint un dépassement d'environ +30 mV, produisant une montée nette de type tout-ou-rien (Figure 4A). Les caractéristiques typiques du PA comprennent un APD90 d'environ 530 ms, un APD50 d'environ 460 ms et une vitesse maximale de montée (dV/dtmax) d'environ 50 V s-1. Un PMR dépolarisé (moins négatif que -70 mV environ), un dépassement réduit ou absent, une vitesse de montée ralentie, ou l'incapacité à maintenir un tir répétitif avec une amplitude et une durée stables dans la majorité des cas indique une cellule endommagée ou mal scellée, qui ne peut pas être utilisée pour évaluer les caractéristiques du PA.
Courant sodique rapide (INa)
Le courant sodique rapide sous-tend la phase de montée du potentiel d'action et constitue un marqueur sensible de l'intégrité membranaire et de la qualité du clamp. À l'aide des solutions à base de Cs+ indiquées dans le Tableau 1, on enregistre un courant entrant important, à activation et inactivation rapides, noté INa (Figure 5A). Chez les myocytes jeunes et sains, INa devient détectable vers -60 mV, atteint une densité maximale d'environ -13 pA pF−1 vers -30 mV et s'inverse vers +20 mV (Figure 5B). La constante de temps d'inactivation diminue de ~8 ms à -50 mV à ~2 ms à -10 mV, et la tension d'inactivation à moitié se situe vers -70 mV13 (Figure 5C,D). Une amplitude fortement réduite du courant de crête, un potentiel d'inversion déplacé ou mal défini, ou des cinétiques d'activation/inactivation ralenties et déformées indiquent un contrôle de tension insuffisant (erreur de résistance série) ou une intégrité membranaire altérée, et non pas le processus d'isolement lui-même.
Courants calciques (ICaL et ICaT)
Enregistrées avec les solutions pour le courant calcique (Tableau 1), les cardiomyocytes de N. furzeri présentent un courant calcique entrant net comportant deux composantes. Le courant commence à s'activer vers -60 mV, indiquant une composante de type T (ICaT) en plus du courant dominant de type L (ICaL), et atteint une densité maximale d'environ -7 pA pF−1 entre -10 mV et 0 mV (Figure 6B). L'identité des composantes est confirmée par une approche pharmacologique : 10 µM de nifédipine bloquent partiellement le courant, tandis que 100 µM entraînent une inhibition quasi-complète (Figure 6A). Il est important de noter qu'une concentration de 100 µM de nifédipine a été utilisée uniquement dans des expériences de contrôle spécifiques afin de vérifier que le courant résiduel après application de 10 µM de nifédipine est pleinement sensible à des concentrations plus élevées, et peut donc être identifié comme ICaT. Pour les enregistrements standards, 50 µM suffisent à bloquer complètement le courant net ICa . La composante ICaL est définie comme le courant déclenché à partir d'un potentiel de maintien de -50 mV, et la composante ICaT est obtenue par différence entre le courant enregistré à -90 mV et le courant ICaL isolé (Figure 6C,D). Un courant entrant bien résolu, sensible à la nifédipine, avec les tensions d'activation et de courant maximal décrites, indique des canaux calciques bien préservés.
Courants potassiques rectificateurs différés (IKr et IKs)
La présence de courants potassiques sortants confirme que le mécanisme de repolarisation reste fonctionnellement intact après l'isolement. Dans les conditions pharmacologiques (Tableau 2), une dépolarisation à -40 mV et au-dessus déclenche un courant sortant dans toutes les cellules saines. Deux composantes sont distinguées à l’aide de bloqueurs sélectifs : le rectificateur lent différé (IKs), sensible au chromanol 293B (20 µM), et le rectificateur rapide différé (IKr), sensible à l’E4031 (1 µM) (Figure 7A,B). Chez les myocytes de poissons jeunes, IKs, ainsi que IKr, atteignent une densité d’environ 1 pA pF−1 aux potentiels fortement dépolarisés (Figure 7C,D). La présence des deux composantes du rectificateur différé, qui jouent un rôle majeur dans la repolarisation ventriculaire humaine mais contribuent moins dans les modèles rongeurs standards14, sert de validation clé que la cellule enregistrée est un myocyte ventriculaire d’N. furzeri possédant des courants de repolarisation intacts.
Courant rectificateur entrant de fond (IK1)
Le courant rectificateur entrant de base fixe le potentiel de membrane au repos et peut être facilement évalué à l’aide d’un protocole de rampe de tension allant de +60 à -120 mV (Figure 7E). Dans une cellule saine, IK1 s’inverse vers -80 mV, ce qui est conforme au PRM mesuré en mode « clampage de courant ». À des potentiels positifs par rapport au potentiel d'inversion, IK1 présente un renflement sortant caractéristique, atteignant un pic de plusieurs pA pF−1 (Figure 7F). Un potentiel d'inversion éloigné de -80 mV ou une fuite résiduelle importante indique un mauvais scellement ou une membrane endommagée.
Dans l'ensemble, une préparation est considérée comme réussie lorsqu'elle produit des cellules allongées, de forme allongée, avec des membranes lisses et intactes capables de former des scellements gigaohmiques et de présenter le profil de potentiel d'action de référence ainsi que les signatures de courant décrites ci-dessus. L'obtention de plusieurs cellules de ce type à partir d'un même cœur confirme que la dissociation enzymatique a préservé à la fois l'intégrité membranaire et l'ensemble complet des canaux ioniques cardiaques nécessaires aux études électrophysiologiques ultérieures.
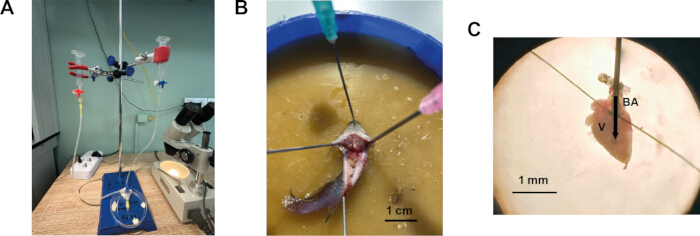
Figure 1 : Procédure d'isolement de cardiomyocytes ventriculaires à partir du cœur de N. furzeri. (A) Système d'isolement de cardiomyocytes modifié pour les petits poissons. (B) Poisson fixé sur une plaque de dissection, face ventrale vers le haut, avec une incision transversale et longitudinale du péritoine. (C) Cœur de N. furzeri canulé et fixé en vue d'une perfusion. BA – bulbe artériel, V – ventricule. La flèche indique le sens d'écoulement de la solution vers le ventricule. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
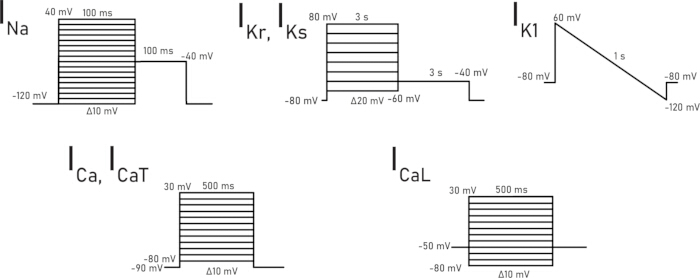
Figure 2 : Protocoles de blocage de tension utilisés pour l'enregistrement de chaque courant ionique spécifique. Veuillez cliquer ici pour afficher une version agrandie de cette figure.
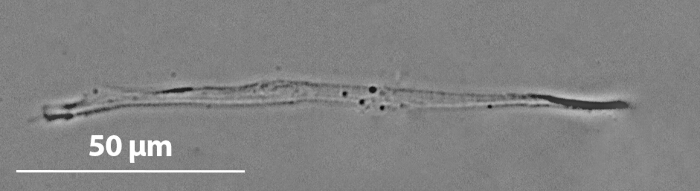
Figure 3 : Microphotographie représentative d’un cardiomyocyte ventriculaire provenant d’un N. furzeri jeune. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
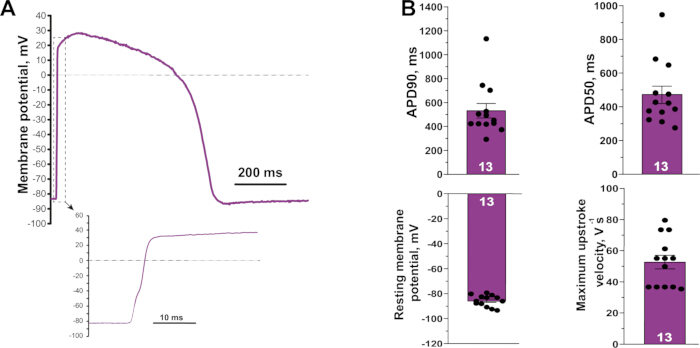
Figure 4 : Potentiel d'action représentatif enregistré à partir d'un cardiomyocyte ventriculaire d'un N. furzeri jeune. (A) Forme d'onde du potentiel d'action. L'encart montre la phase de montée rapide à une échelle temporelle agrandie. (B) Caractéristiques du potentiel d'action mesurées sur des myocytes jeunes isolés (potentiel de membrane au repos, APD50, APD90 et vitesse maximale de montée). (N = 7, n = 13). Les valeurs sont exprimées comme moyenne ± E.M.S. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
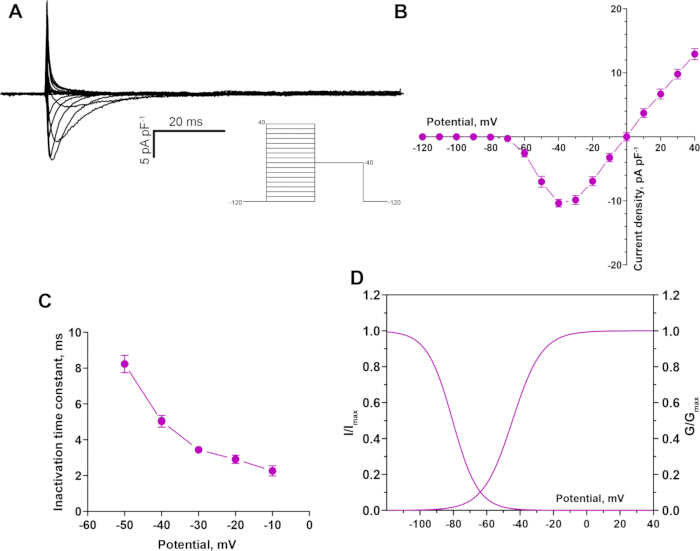
Figure 5 : Courant sodique rapide (INa) enregistré à partir d'un cardiomyocyte ventriculaire N. furzeri jeune. (A) Enregistrement représentatif du courant INa. (B) Relation courant-tension pour INa, s'activant vers -60 mV avec un pic vers -30 mV. (C) Dépendance tensionnelle de la constante de temps d'inactivation. (D) Courbes d'activation et d'inactivation en régime permanent. (N = 5, n = 11). Les valeurs sont exprimées comme moyenne ± E.M.S. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
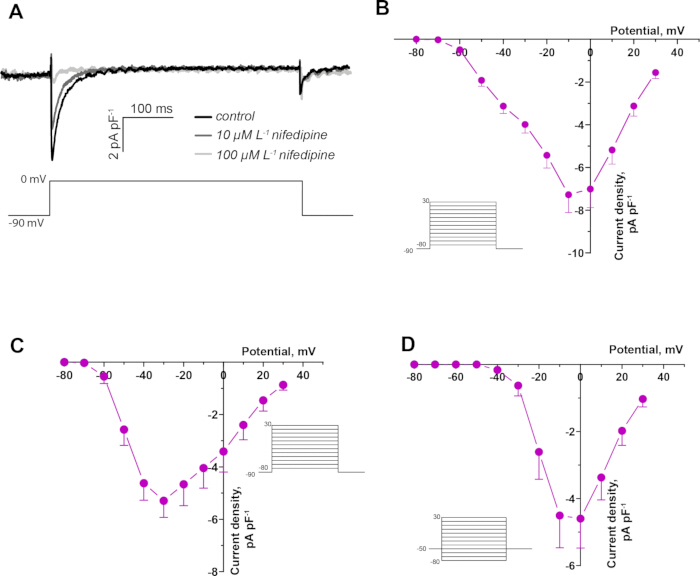
Figure 6 : Courants calciques dans un cardiomyocyte ventriculaire jeune de N. furzeri. (A) Enregistrement représentatif du courant calcique total en condition témoin et en présence de 10 µM et de 100 µM de nifédipine dans un cardiomyocyte ventriculaire jeune de N. furzeri. (B) Relation courant-tension pour le courant calcique total, s'activant vers -60 mV avec un pic vers -10 mV (N = 5, n = 11). (C) Relation courant-tension pour la composante de type T (ICaT) (N = 3, n = 6). (D) Relation courant-tension pour la composante de type L (ICaL) (N = 5, n = 7). Les valeurs sont exprimées en moyenne ± E.M. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
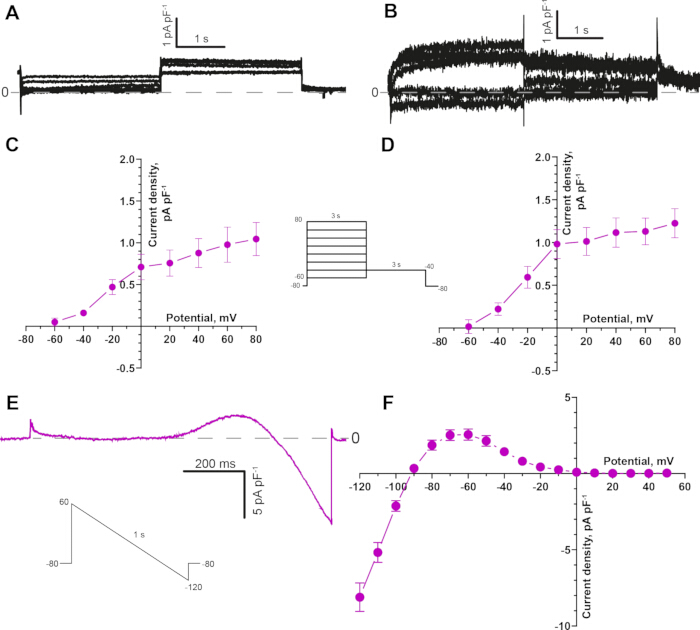
Figure 7: Courants potassiques chez les jeunes N. furzeri cardiomyocytes ventriculaires. (A) Enregistrement représentatif du courant rectificateur lent différé (IKs), isolées en présence de E4031 (1 µM) pour bloquer IKr. (B) Enregistrement représentatif du courant rectificateur différé rapide (IKr), isolé en présence de chromanol 293B (20 µM) pour bloquer IKs. (CRelation courant-tension pour IKs actuel (N = 5, n = 9). (DRelation courant-tension pour IKr actuel (N = 5, n = 10). (E) Représentatif IK1 enregistré avec un protocole de rampe descendante de tension allant de +60 mV à -120 mV. (F) Relation courant-tension pour IK1, s'inversant vers -80 mV (N = 5, n = 18). Les valeurs sont exprimées comme moyenne ± M.E.B. Veuillez cliquer ici pour visualiser une version agrandie de cette figure.
| Nom de la solution | Réactif et concentration (mM) |
| Solution extracellulaire pour les potentiels d'action et les courants potassiques | 150 NaCl, 3 KCl, 1,2 MgCl2, 1,8 CaCl2, 10 glucose, 10 HEPES ; pH 7,4 ajusté avec NaOH |
| Solution intracellulaire pour les potentiels d'action et les courants potassiques | 140 KCl, 1 MgCl2, 5 EGTA, 4 MgATP, 0,03 Na2GTP et 10 HEPES ; pH 7,2 ajusté avec KOH |
| Solution extracellulaire pour le courant sodique | 20 NaCl, 123 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucose et 10 HEPES ; pH 7,2 ajusté avec CsOH |
| Solution intracellulaire pour le courant sodique | 5 NaCl, 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP et 15 TEA ; pH 7,2 ajusté avec CsOH |
| Solution extracellulaire pour le courant calcique | 150 NaCl, 3 CsCl, 1 MgCl2, 1,8 CaCl2, 10 glucose et 10 HEPES ; pH ajusté à 7,2 par NaOH |
| Solution intracellulaire pour le courant calcique | 130 CsCl, 1 MgCl2, 5 EGTA, 10 HEPES, 4 MgATP, 0,03 Na2GTP et 15 TEA ; pH 7,2 ajusté avec CsOH. |
Tableau 1 : Composition des solutions extracellulaire et intracellulaire pour l’enregistrement en enregistrement en mode « patch-clamp » des potentiels d’action et des courants ioniques.
| Courant enregistré | Concentration du bloqueur (μM) | |
| 1. | Potentiel d'action | Aucun bloqueur requis |
| 2. | IKr | 50 Nifédipine, 20 Chromanol 293B |
| 3. | IKs | 50 Nifédipine, 1 E4031 |
| 4. | IK1 | 50 Nifédipine, 20 Chromanol 293B, 1 E4031 |
| 5. | INa | 50 Nifédipine |
| 6. | ICaT | 1 Tétrodotoxine |
| 7. | ICaL | 1 Tétrodotoxine |
Tableau 2 : Bloqueurs pharmacologiques ajoutés aux solutions extracellulaires pour l'enregistrement sélectif d'un courant ionique donné.
Discussion
L'isolement réussi de cardiomyocytes ventriculaires viables provenant de N. furzeri constitue une avancée méthodologique permettant la caractérisation directe, au niveau cellulaire, du remodelage cardiaque lié à l'âge par des approches électrophysiologiques. Cette résolution est essentielle pour identifier les mécanismes ioniques spécifiques à la base du dysfonctionnement cardiaque associé à l'âge, lesquels ne peuvent être distingués à l'aide de préparations organiques ou de cœurs entiers seuls. L'étude de cardiomyocytes natifs fournit un aperçu direct de la manière dont le vieillissement modifie les propriétés électrophysiologiques fondamentales, notamment les courants ioniques et les caractéristiques du potentiel d'action.
Plusieurs étapes du présent protocole sont essentielles pour obtenir des cardiomyocytes de haute qualité, adaptés au patch-clamp, à partir de N. furzeri. Tout d'abord, l'activité enzymatique varie d'un lot à l'autre, de sorte que les concentrations de collagénase et de trypsine doivent être ajustées pour chaque préparation. Une sur-digestion provoque des lésions membranaires et une perte de la fonction des canaux ioniques, tandis qu'une sous-digestion fournit peu de cellules et empêche un contact stable entre la pipette et la membrane. Les cellules isolées conservent une morphologie allongée, de forme fusiforme, avec un sarcolemme lisse et intact, indiquant le maintien de l'intégrité cellulaire pendant l'isolement ; chez certaines cellules, une striation sarcomérique faible peut également être observée au microscope optique. Ce maintien est crucial pour obtenir des données électrophysiologiques fiables, car les cellules endommagées présentent souvent une fonction altérée des canaux ioniques et des propriétés membranaires compromises. Deuxièmement, la petite taille du cœur de N. furzeri constitue un défi technique qui nécessite une optimisation minutieuse de l'isolement enzymatique et une dissection manuelle précise, et le rendement cellulaire par cœur est inférieur à celui des préparations mammaliennes. De plus, une perfusion irrégulière ou des fuites provenant du cœur canulé comptent parmi les difficultés les plus fréquentes pouvant survenir au cours de la procédure. S'entraîner à la canulation sur plusieurs cœurs afin de maîtriser un angle d'approche et une profondeur constants. S'assurer que la pointe de l'aiguille est exempte de bulles d'air et que le bulbe est ligaturé solidement sans sectionner le tissu. En outre, avant d'entamer l'enregistrement, vérifier que les cellules ont une forme allongée, avec une membrane lisse et intacte (une striation faible peut être visible dans certaines cellules). Les cellules arrondies ou granuleuses doivent être écartées. Vérifier que toutes les solutions ont été préparées fraîchement et correctement ajustées en pH. S'assurer que la résistance de la pipette se situe dans la plage recommandée (2,0–3,0 MΩ). Pendant l'enregistrement, contrôler les paramètres de l'amplificateur décrits ci-dessus ; la résistance d'accès après compensation ne doit pas dépasser 10–12 MΩ ; le potentiel de membrane au repos est moins négatif que −70 mV en mode courant-contrôle, et la cellule forme un gigascelle stable.
Néanmoins, le protocole fournit de manière fiable des cellules de haute qualité adaptées aux enregistrements en enregistrement par électrode à succion et potentiellement à d'autres applications, établissant N. furzeri comme un modèle pratique du vieillissement cardiaque cellulaire. N. furzeri présente des avantages évidents par rapport aux modèles mammaliens traditionnels pour l'étude du vieillissement cardiaque. En tant que vertébré vivant le moins longtemps pouvant être élevé en captivité, il permet des études longitudinales sur le vieillissement cardiaque dans des délais pratiques, contrairement aux modèles murins qui nécessitent 18 à 24 mois pour atteindre des âges biologiques comparables15. Malgré sa courte espérance de vie, il présente des caractéristiques clés du vieillissement cardiaque chez les vertébrés, notamment un remodelage électrophysiologique, une durée du potentiel d'action préservée accompagnée d'une vitesse de montée réduite, et une régulation à la baisse de courants ioniques importants6.
Comparaison avec les approches existantes d'isolement des cardiomyocytes.
L'isolement enzymatique de cardiomyocytes ventriculaires viables est une étape préalable bien établie pour la physiologie cellulaire unique chez un large éventail d'espèces. Chez les mammifères, l'approche considérée comme la référence repose sur une perfusion rétrograde de l'aorte avec un tampon sans calcium, suivie d'une solution contenant des enzymes — généralement du collagénase et des protéases — appliquée sous pression et température contrôlées sur le cœur intact. Cette stratégie permet une distribution homogène des enzymes via la circulation coronaire, un lavage efficace du sang et une dissociation relativement douce du myocarde, produisant un grand nombre de myocytes en forme de bâtonnets, adaptés à des enregistrements en configuration « patch-clamp » haute résolution16,17.
Chez les poissons téléostéens, cependant, l'organisation anatomique du cœur et l'absence d'un système artériel coronaire comparable à celui des mammifères nécessitent des modifications importantes. Chez le poisson-zèbre, l'un des modèles de petit poisson les plus utilisés en recherche cardiovasculaire, l'isolement réussi de cardiomyocytes ventriculaires repose sur la digestion du cœur entier dans une solution enzymatique pendant une période relativement prolongée8,9. Dans ces protocoles, le cœur excisé est transféré directement dans une goutte ou un petit volume de solution enzymatique, où il est incubé à température ambiante ou à une température adaptée à l'espèce, suivie d'une trituration mécanique pour libérer les cellules individuelles. Cette approche s'est révélée efficace pour obtenir des cardiomyocytes viables et striés, permettant l'enregistrement des principaux courants ioniques11.
Malgré son utilité, la stratégie de digestion par lots présente plusieurs limites lorsqu'elle est appliquée à des cœurs très petits ou particulièrement fragiles. Premièrement, l'exposition aux enzymes est moins contrôlée : les couches externes du ventricule sont exposées à une concentration enzymatique effective plus élevée et pendant une durée plus longue que les couches internes, ce qui peut entraîner une digestion hétérogène et un mélange de cellules sous-digérées et sur-digérées. Deuxièmement, l'immersion prolongée dans la solution enzymatique augmente le risque de sur-digestion, notamment lorsque l'activité des lots d'enzymes varie ou lorsque le cœur est exceptionnellement petit. Troisièmement, l'élimination du sang repose principalement sur la diffusion passive et des rinçages manuels doux, qui peuvent s'avérer insuffisants pour nettoyer complètement les espaces luminaux étroits d'un petit ventricule de téléostéen.
Nous avons conservé les principes généraux du traitement sans calcium, de la digestion enzymatique et de la trituration douce. Toutefois, l'étude a modifié l'administration des solutions en canulant le bulbe artériel et en perfusant directement la lumière ventriculaire. Cette approche permet au chercheur d'éliminer le sang des espaces ventriculaires avant la digestion, de passer d'une solution à l'autre sans déplacer le cœur, et d'interrompre le traitement enzymatique dès que la paroi ventriculaire commence à se détacher. Ces modifications sont particulièrement importantes pour le cœur petit et délicat de N. furzeri, chez lequel une immersion prolongée dans une solution enzymatique peut entraîner une digestion excessive et une qualité cellulaire réduite.
Applications futures
La méthode d'isolement décrite ici ouvre plusieurs perspectives pour la recherche future. Premièrement, elle permet la caractérisation systématique des changements dépendant de l'âge dans la morphologie du potentiel d'action ainsi que dans la densité, la cinétique et la dépendance en tension des courants ioniques dans les cardiomyocytes de N. furzeri, complétant ainsi les descriptions moléculaires et histologiques récentes du vieillissement cardiaque chez cette espèce2,3,4,5. Deuxièmement, le protocole peut être combiné à des outils pharmacologiques afin d'évaluer comment des interventions modulant la durée de vie ou l'état de santé influencent l'électrophysiologie cardiaque au niveau cellulaire unique. Troisièmement, les cardiomyocytes isolés de N. furzeri peuvent être utilisés pour des applications allant au-delà des enregistrements en mode « patch-clamp », notamment des analyses moléculaires (qPCR, RNA-séquençage, protéomique) des modifications liées à l'âge dans l'expression des canaux ioniques et dans les modifications post-traductionnelles, l'immunocytochimie, et l'imagerie à haute résolution de l'organisation des sarcomères. Enfin, le cadre méthodologique décrit ici peut être adapté à d'autres petits modèles téléostéens présentant une taille et une anatomie cardiaques similaires, élargissant ainsi l'utilité de N. furzeri comme modèle translationnel pour la recherche sur le vieillissement cardiaque.
Déclarations de divulgation
Les auteurs déclarent qu’ils n’ont aucun intérêt financier concurrent.
Remerciements
Ce travail a été soutenu par le Russian Science Foundation (subvention n° 22-14-00075). Les auteurs remercient Andrei Nikiforov pour son aide dans l'élevage et le maintien de la population de Nothobranchius furzeri utilisée dans cette étude.
Matériaux
| Nom | Entreprise | Numéro de catalogue | Commentaires |
|---|---|---|---|
| Seringue à insuline de 1 mL | Med Aim | 939863 | |
| Seringues de 10 mL | Changzhou Jinlong Medical Plastic Appliancy Co | - | |
| Boîte de Pétri de 100 mm | SARSTEDT | 83.3902 | |
| Pipette micrométrique de 100 μL | Thermo Scientific | 4640040 | |
| Boîte de culture tissulaire de 35 mm | SPL LIFE SCIENCES | 11035 | |
| Robinet d'arrêt à trois voies | iLife Medical Devices Pvt. Ltd | 902.07.10 | |
| Tube de 500 μL | Eppendorf | EP0030124537-500EA | |
| Pointe de 5-200 μL | Deltalab | 200009 | |
| Amplificateur | Molecular devices | Axopatch 200B | |
| Blu Tack | BOSTIK | 202401906 | |
| Capillaires en verre borosilicaté | Sutter Instrument | B150-110-10 | |
| Albumine sérique bovine | Dia-M | 9048-46-8 BSA.0100 | |
| CaCl2*2H20 | Sigma-Aldrich | C5080 | |
| Chromanol 293B | Sigma-Aldrich | C2615 | |
| Collagénase de type 1A | Sigma-Aldrich | C9891 | |
| CsCl | Acros Organics | 422855000 | |
| CsOH | Sigma-Aldrich | 232068 | |
| Aiguille de distribution (32G) | BSTEAN | 744370739503 | |
| E4031 | MedChemExpress | HY-15551 | |
| EGTA | Sigma-Aldrich | E-4378 | |
| Glucose | helicon | Solarbio G8150-500G | |
| HEPES | Sigma-Aldrich | H3375 | |
| Microscope inversé | Nikon | - | Eclipse Ti-S |
| KCl | Chimmed | 00000000089 | |
| KH2PO4 | helicon | SRL-90654-500G | |
| KOH | helicon | SRL-38630-1KG | |
| MgATP | MACKLIN | A922363 | |
| MgCl2*6H2O | helicon | Solarbio M8161 | |
| MgSO4*7H2O | helicon | SRL-74440-500G | |
| Micromanipulateur | RWD | MM-500 | |
| Pinces ophtalmiques microchirurgicales | CILITA | F-111T | |
| Ciseaux ophtalmiques microchirurgicaux | CILITA | S-056S | |
| Na2GTP | Sigma-Aldrich | 51120 | |
| NaCl | helicon | H-1418-1.0 | |
| NaOH | helicon | SRL-13913-500G | |
| Nifédipine | Sigma-Aldrich | N7634 | |
| Système de perfusion | Biotechnologies | Bio_4_p | |
| Tireuse de pipettes | Narishige Group | PC-10 | |
| Tubes en silicone (d = 8 mm) | MEDSIL | TY 9398-004-18037666-94 | |
| Pied | NV-lab | 00000034085 | |
| Microscope stéréo | Labkompleks LCC | 10557 | |
| Taurine | Acros Organics | 166545000 | |
| Chlorure de tétraéthylammonium (TEA) | Merck | 822148 | |
| Tétradotoxine | Tocris Bioscience | 1078 | |
| Tripsine | Sigma-Aldrich | T0303 | |
| Logiciel WinWCP | University of Strathclyde | - | V5.7.5 |
Références
- Nakou E et al. Healthy aging and myocardium: a complicated process with various effects in cardiac structure and physiology. Int J Cardiol. 2016;209:167-175.
- Ma X et al. Nothobranchius furzeri: a vertebrate model for studying cardiac aging and cellular senescence. NPJ Aging. 2025;11(1):63.
- Valdesalici S, Cellerino A. Extremely short lifespan in the annual fish Nothobranchius furzeri. Proc R Soc Lond B Biol Sci. 2003;270(Suppl 2):S189-191.
- Platzer M, Englert C. Nothobranchius furzeri: a model for aging research and more. Trends Genet. 2016;32(9):543-552.
- Otsuka T, Matsui H. The African turquoise killifish (Nothobranchius furzeri): a model of age-related diseases and declining regenerative capability across multiple organs. Mech Ageing Dev. 2025;226:112087.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Abramochkin DV. Aging-associated remodeling of ionic currents in ventricular myocytes of seasonal fish Nothobranchius furzeri. Comp Biochem Physiol A Mol Integr Physiol. 2026;317:112013.
- Sander V et al. Isolation and in vitro culture of primary cardiomyocytes from adult zebrafish hearts. Nat Protoc. 2013;8(4):800-809.
- Singareddy SS, McClenaghan C, Roessler HI, Tryon R, Nichols CG. Isolation of cardiac and vascular smooth muscle cells from adult, juvenile, larval and embryonic zebrafish for electrophysiological studies. J Vis Exp. 2022;(180):63225.
- Vornanen M. Sarcolemmal Ca influx through L-type Ca channels in ventricular myocytes of a teleost fish. Am J Physiol Regul Integr Comp Physiol. 1997;272(5):R1432-R1440.
- Polačik M, Blažek R, Reichard M. Laboratory breeding of the short-lived annual killifish Nothobranchius furzeri. Nat Protoc. 2016;11(8):1396-1413.
- Dzhumaniiazova I, Vornanen M, Pustovit OB, Voronkov YI, Abramochkin DV. Effects of tetrodotoxin and ranolazine on the late INa of zebrafish ventricular myocytes. J Evol Biochem Phys. 2022;58(Suppl 1):S22-S30.
- Brette F et al. Characterization of isolated ventricular myocytes from adult zebrafish (Danio rerio). Biochem Biophys Res Commun. 2008;374(1):143-146.
- Filatova TS, Dzhumaniiazova IH, Shamshura AV, Pustovit OB, Abramochkin DV. Reduction of fast sodium current in the myocardium of fish (N. furzeri) during aging. Bull Exp Biol Med. 2026;181(1):109-116.
- Joukar S. A comparative review on heart ion channels, action potentials and electrocardiogram in rodents and human: extrapolation of experimental insights to clinic. Lab Anim Res. 2021;37(1):25.
- Holtze S et al. Alternative animal models of aging research. Front Mol Biosci. 2021;8.
- Wolska BM, Solaro RJ. Method for isolation of adult mouse cardiac myocytes for studies of contraction and microfluorimetry. Am J Physiol Heart Circ Physiol. 1996;271:H1250-H1255.
- Louch WE, Sheehan KA, Wolska BM. Methods in cardiomyocyte isolation, culture, and gene transfer. J Mol Cell Cardiol. 2011;51(3):288-298.
Réimpressions et autorisations
Cet article a été publié
Vidéo bientôt disponible