שיטה חדשה כרוכה בניתוח כמותי של סריג (העברת אנרגית פורסטר תהודה) אותות מתוארת ללימוד קינטיקה אנזים. K M ו K חתול התקבלו להידרוליזה של התחום קטליטי של SENP1 (פרוטאז הספציפי SUMO / Sentrin 1) לטרום SUMO1 (משתנה קטן יוביקוויטין דמוי). העקרונות הכלליים של מחקר הכמותי קינטית-סריג מבוסס פרוטאז יכולים להיות מיושמים על פרוטאזות אחרות.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
כמותית סריג ניתוח (תהודת העברת אנרגית פורסטר) לקביעת SENP1 פרוטאז קינטיקס
במאמר זה
סיכום
תקציר
שינויי posttranslational הפיכים של חלבונים עם חלבוני ubiquitin או יוביקוויטין דמויים (Ubls) נמצאים בשימוש נרחב באופן דינמי כדי לווסת את פעילות חלבון ויש תפקידים מגוונים בתהליכים ביולוגיים רבים. לדוגמה, SUMO קוולנטית משנה כמה גדולים או חלבונים עם תפקידים חשובים בתהליכים תאיים רבים, כולל הסדרת מחזור התא, הישרדות תא ומוות, בתגובת ניזק לדנ"א, ומתח תגובת 1-5. SENP, כפרוטאז SUMO ספציפי, מתפקד כendopeptidase בהתבגרות של מבשרי סומו או כisopeptidase להסיר SUMO מחלבוני המטרה שלו ולרענן את מחזור SUMOylation 1,3,6,7.
ההתייעלות או הסגולי הקטליטית של אנזים מאופיינת הטוב ביותר על ידי היחס בין הקבועים קינטיים, יא החתול / K M. בכמה מחקרים, הפרמטרים קינטיים של זוגות SUMO-SENP נקבעו על ידי שיטות שונות, כולל polyacrylamide ג'ל המבוסס על מערב כולו כתם, radioactive כותרתו מצע מתחם, פלורסנט או חלבון מסומן מצע 8-13. עם זאת, טכניקות ג'ל מבוסס polyacrylamide, המשמשות את החלבונים "ילידים", אלא הן מייגעות ותובעני מבחינה טכנית, שאינם מוכן להשאיל את עצמם לניתוח כמוני מפורט. הושג k חתול / K M ממחקרים באמצעות tetrapeptides או חלבונים עם ACC (7-אמינו-4-carbamoylmetylcoumarin) או AMC (7-אמינו-4-methylcoumarin) fluorophore היו או עד שני סדרי גודל נמוך יותר מאשר המצעים הטבעיים או לא יכול להבדיל באופן ברור את ISO ו-פעילויות endopeptidase של SENPs.
מבחני הפרוטאז לאחרונה, סריג מבוססים שמשו כדי לחקור את אנזימי deubiquitinating (dubs) או SENPs עם זוג סריג של חלבון פלואורסצנטי ציאן (CFP) וחלבון פלואורסצנטי צהוב (YFP) 9,10,14,15. היחס בין הפליטה לפליטת acceptor תורם שמש כפרמטר הכמותי לסריג צג אות לפרוטאז activity נחישות. עם זאת, שיטה זו התעלמה-זיהומים צולבי אותות ובאורכי גל פליטת acceptor תורם ידי acceptor ותורם עצמי פלואורסצנטי ולכן לא הייתה מדויק.
פתחנו רומן רגיש מאוד וassay פרוטאז סריג מבוסס כמותית לקביעת הפרמטרים קינטיים של התבגרות מראש SUMO1 ידי SENP1. מהונדס סריג CyPet הזוג וYPet עם יעילות השתפרה באופן משמעותי ותשואת סריג קוונטי קרינה, שמשו כדי ליצור את CyPet-(מראש SUMO1) המצע YPet-16. אנו נבדלים ולכמת אותות קרינה מוחלטים נתרמו על ידי התורם וacceptor וסריג באורכי גל acceptor ופליטה, בהתאמה. הערך של k חתול / K M הושג כ( 3.2 ± 0.55) x10 ז 7 -1 של -1 של SENP1 כיוון-SUMO1 מראש, שהיא בהסכם עם פרמטרים קינטיים אנזימטית כלליים. לכן, שיטה זו הנה בתוקף וניתן להשתמש ביsa בכלל ניגשים לאפיין פרוטאזות אחרות גם כן.
פרוטוקול
1. בונה פלסמיד
- להגביר את מסגרות קריאה הפתוחות של הגנים באמצעות PCR, ולשכפל את מוצרי ה-PCR לוקטור PCRII-topo.
- לאשר את המוצרים על ידי קביעת רצף, ולשכפל את קידוד cDNA CyPet-(מראש SUMO1)-YPet, CyPet-SUMO1, YPet ותחומים קטליטי של SENP1 ל( ב) pET28 הווקטור עם תג hexahistidine N-מסוף.
2. ביטוי חלבון וטיהור
- להפוך תאי coli Escherichia של מתח BL21 (DE3) עם pET28 (ב) וקטורי קידוד CyPet-(מראש SUMO1)-YPet, CyPet-SUMO1, YPet והתחומים קטליטי של SENP1.
- גדל את החיידקים שהופכים במדיום 2xYT ל3 שעות על 37 מעלות צלזיוס (רועד ב 250 סל"ד) כדי להגיע צפיפות אופטית של 0.5 ב 600 ננומטר.
- הוסף 100 מיקרומטר איזופרופיל-β-D-thiogalactoside (IPTG) (ריכוז סופי) כדי לגרום לביטוי חלבונים ולנער עבור 16 שעות ב 25 ° C ב 200 סל"ד.
- לקצור את החיידקים על ידי centrifugation ב10000 סל"ד ב 4 מעלות צלזיוס למשך 5 דקות וresuspend אותם במאגר של 20 מ"מ טריס-HCl (pH 7.4), mM NaCl 50, ומ"מ imidazole 5.
- Sonicate התאים למשך 10 דקות במרווחי 5-sec בהגדרת הספק של 25 ואט באמצעות 4000 sonicator MiSonics ולאסוף אותם ידי צנטריפוגה ב35000 XG ב 4 מעלות צלזיוס למשך 30 דקות.
- הגדר את העמודה עם 500 חרוזי המ"ל Ni-נ.ת. ע לתרבות 1 ליטר ולהעביר את supernatant לעמודה.
- לשטוף את השרף עם חיץ של 20 מ"מ טריס-HCl (pH 7.4), mM NaCl 500, ו 10 המ"מ imidazole פעמים.
- חלבון Elute עם חיץ של 20 מ"מ טריס-HCl (pH 7.4), 500 המ"מ NaCl, והמ"מ imidazole 500 ודיאליזה לחיץ של 20 המ"מ טריס-HCl (pH 7.4), 50 mM NaCl וmM dithiothreitol 1 (DTT) בשעה 4 מעלות צלזיוס למשך הלילה.
- קביעת הריכוזים של החלבונים המטוהרים על ידי assay ברדפורד. שיטה חלופית למדידת ריכוז חלבון תהיה אלקטרופורזה ג'ל SDS-PAGE ואז מוכתם בCoomassie הכחול אחריו עם הדמיהכמותית.
3. כמותית סריג ניתוח ספקטרום
- האסטרטגיה הכללית לבדיקה התבססה על לדאוג איתות (איור 1). זוג סריג, CyPet וYPet, היה מתויג לN-ו-C-טרמיני, בהתאמה, של טרום SUMO1. SENP1 דבק CyPet-(מראש SUMO1)-YPet חלבון ההיתוך באתר גלאי-הגלאי בC-הסופי של SUMO1, ולכן משחרר את זנב SUMO עם YPet. סריג אות מופרת, וכתוצאה מכך גידול של הפליטה מCyPet וירידה דרמטית של הפליטה של YPet באורך גל עירור CyPet.
- כאשר נרגש 414 ננומטר, פליטת פלואורסצנטי הכוללת של CyPet-(מראש SUMO1)-YPet ידי אור באורך הגל ב530 ננומטר ניתן לגזור משלושה מקורות: הפליטה המוחלטת סריג המושרה של YPet, CyPet הישיר הפליטה וYPet הישיר פליטה (איור 2).
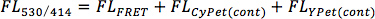
בי FL 530/414 </ תת> היא פליטת פלואורסצנטי הסך 530 ננומטר בכאשר נרגש ב414 ננומטר, פלורידה הסריג הוא מוחלט סריג אות, פלורידה CyPet (המשך) היא הפליטה הישירה CyPet כאשר נרגש ב414 ננומטר, ופלורידה YPet (המשך) היא YPet לכוון פליטה כאשר נרגש ב414 ננומטר. התחתי של (המשך) עומד על תרומה.
- הפליטה הישירה של CyPet ב530 ננומטר הייתה פרופורציונלית לפליטה שלה ב 475 ננומטר כאשר נרגשת ב414 ננומטר עם יחס קבוע של α. CyPet-SUMO1 הוכן בריכוזים של 50, 100, 200, 500, 750 ננומטר ו1 mM , ופליטות וב475 530 ננומטר נמדדו לאחר עירור ב414 ננומטר כדי לקבוע α (איור 3-1).
- הפליטה הישירה של YPet ב530 ננומטר תחת עירור ב414 ננומטר הייתה פרופורציונלית לפליטה שלה ב 530 ננומטר כאשר נרגשת ב475 ננומטר עם יחס קבוע של β. YPet הוכנה בריכוזים של 50, 100, 200, 500, 750 אnd 1000 ננומטר, והפליטה ב530 ננומטר נמדד כאשר הדגימות התלהבו מאורכי גל של 414 ננומטר 475 ולקבוע β (איור 3-2).
- כאשר CyPet-(מראש SUMO1)-YPet היה מתעכל על ידי SENP1, המחשוף שוחרר CyPet-SUMO1 וזנב SUMO1 עם YPet. כאשר המתחם היה נרגש ב414 ננומטר, פליטת פלואורסצנטי ב 530 ננומטר (FL של 530/414) הייתה ירידה אבל עדיין יכולה להיות מחולק לשלושה חלקים כמו:
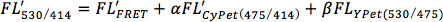
בי FL '530/414 היא פליטת פלואורסצנטי סך 530 ננומטר באחרי עיכול כאשר נרגשת ב414 ננומטר, פלורידה "סריג הוא האות נותרה המוחלטת סריג, CyPet' פלורידה (475/414) היא פליטת CyPet ב475 ננומטר לאחר עיכול כש נרגש ב414 ננומטר (כאן פליטת CyPet היא משני חלקים: לא מעוכל CyPet-(מראש SUMO1)-YPet ומתעכל CyPet-SUMO1), ופלורידה YPet(530/475) הוא פליטת YPet כאשר נרגש ב475 ננומטר, שהוא קבוע אם CyPet-(מראש SUMO1)-YPet מתעכל או לא.
- לאחר עיכול על ידי SENP1, שנותר סריג פליטה (FL של סריג) היא:
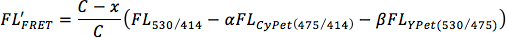
כאשר C הוא הריכוז המוחלט של CyPet-(מראש SUMO1)-YPet וx הוא הריכוז של מתעכל CyPet-(מראש SUMO1)-YPet.
- על ידי שילוב של כל הפריטים, פליטת פלואורסצנטי זוהה ב530 ננומטר תחת עירור של 414 ננומטר (530/414 'פלורידה) היא:

4. Assay פרוטאז סריג מבוסס לחקר קינטי אנזים
- CyPet-(מראש SUMO1)-YPet הודגר עם התחום קטליטי של SENP1 על 37 מעלות צלזיוס בחיץ של 20 המ"מ טריס-HCl (pH 7.4), 50 mM NaCl, 0.1% (נ /v) Tween-20 וDTT 1 מ"מ עד נפח כולל של 80 מ"ל והועבר לצלחת 384 כן.
- ריצות נערכו על ידי מדידת פליטת פלואורסצנטי ב 475 ו530 ננומטר לאחר עירור ב414 ננומטר בפלואורסצנטי multiwell צלחת קורא למשך 5 דקות עם מרווחים 15-sec.
- קצב התגובה (v) היה מתואם עם השינוי בסך של מצע (S) כ:
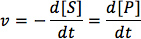
- הריכוז של המוצר גדל באופן אקספוננציאלי בין 0 כ[ S] 0 (ריכוז מצע מקורי) כאשר t = 0:
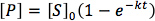
- כאשר t = 0, המהירות המקורית (V 0) היא:
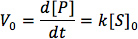
- הקונצרט כלשהוentration של SENP1 היה קבוע, והריכוז של CyPet-(מראש SUMO1)-YPet הוגדל מ 100 פעמים יותר מהריכוז של אנזים, אשר נדרש על ידי משוואת מיכאליס-מנטן.
- כל קריאות הניאון נותחו על ידי שיטת ניתוח סריג כמותית וזמם בתוכנת GraphPad פריזמה V כדי להתאים את משוואת מיכאליס-מנטן. רגרסיה ליניארית יכולה גם להתבצע בסיוע של חבילות תוכנה נפוצות יותר, כמו תוכניות גיליון אלקטרוני (כגון Microsoft Excel).
5. נציג תוצאות
הבשלה של טרום SUMO1 ידי SENP1 ניתן לקבוע על ידי ניטור השינויים באות פלואורסצנציה ב475 ו530 ננומטר במשך התהליך. התוצאה הראתה שמהירות העיכול מראש SUMO1 ידי SENP1 באופן מצע מינון תלוי (איור 4). הדבר מצביע על כך דומיין קטליטי של SENP1 מוצגי פעילות מצוינת להתבגרות של טרום SUMO1. Reac הראשונימהירויות tion חושבו על ידי הניתוח הנ"ל בריכוזי מצע שונים (טבלה 1).
יחס k החתול / K M משמש בדרך כלל כדי להשוות את היעילות של אנזימים שונים עם מצע אחד או אנזים מסוים עם מצעים שונים. K M ו-V מקסימום ניתן לקבל ממשוואת מיכאליס מנטן-על ידי קשירת קשר הראשוניות מהירויות השונות, המתאימות לריכוזים השונים של CyPet-(מראש SUMO1)-YPet (איור 5) חתול k הושג כ.:

על פי הניתוח לעיל, מחושב K M היה 0.21 ± 0.04 מיקרומטר, חתול k היה 6.90 ± 0.28 s -1, ויחס k חתול / K M היה (3.2 ± 0.55) x10 ז 7 -1 > של -1.
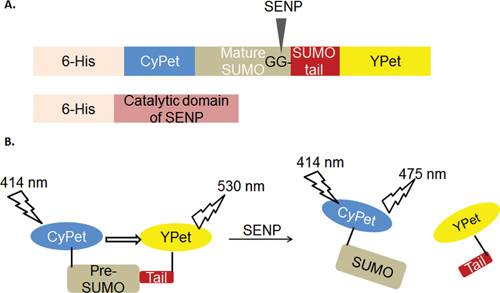
איור 1. גרף של assay פרוטאז סריג המבוסס להבשלה מראש SUMOs של SENP.
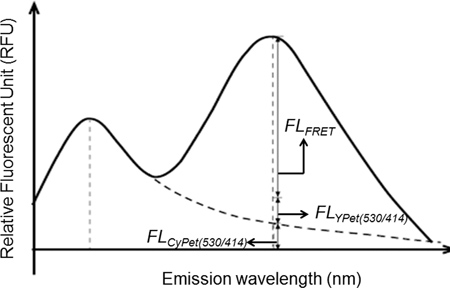
איור 2. ניתוח כמותי של אות ניאון כתרומות על ידי התורם, acceptor וסריג. נתיחה של ספקטרום פליטה מCyPet-(מראש SUMO1)-YPet תחת עירור ב414 ננומטר. פלורידה CyPet (530/414) היא הפליטה של CyPet ב530 ננומטר תחת עירור של 414 ננומטר, פלורידה הסריג היא פליטת סריג המושרית YPet ב530 ננומטר תחת עירור של 414 ננומטר, ופלורידה YPet (530/414) היא הפליטה של YPet ב530 ננומטר תחת עירור של 414 ננומטר.
load/4430/4430fig3.jpg "/>
איור 3. חישוב α כיוון פליטת הגורם וβ.
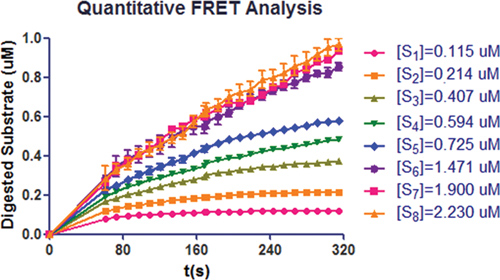
איור 4. ניתוח כמותי של-CyPet (לפני SUMO1)-YPet המעוכל על ידי יחסים שונים של התחום קטליטי של SENP1. תגובות היו במעקב בתוך 5 הדקות הראשונות.
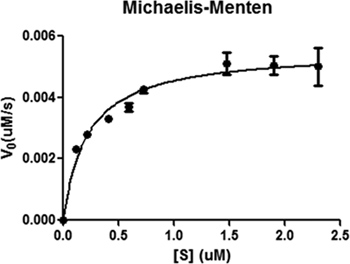
איור 5. ניתוח מיכאליס מנטן-גרפי של עיכול CyPet-(מראש SUMO1) של-YPet ידי SENP1. נתונים זממו ונותחו על ידי GraphPad פריזמה V ורגרסיה ליניארית.
| [S] (מיקרומטר) | V 0 (מיקרומטר / ים) |
| 0.115 | 0.0023 ± 0.00005 |
| 0.214 | 0.0028 ± 0.00004 |
| 0.407 | 0.0033 ± 0.00007 |
| 0.594 | 0.0037 ± 0.00013 |
| 0.725 | 0.0043 ± 0.00012 |
| 1.471 | 0.0051 ± 0.00036 |
| 1.899 | 0.0050 ± 0.00031 |
| 2.300 | 0.0050 ± 0.00062 |
טבלת 1. קביעת מהירויות ראשונית של ההתבגרות של טרום SUMO1 ידי SENP1. בכל ריכוז מצע, ארבע דוגמאות שמשו כדי למדוד את העיכול. סטיית התקן הגיעה מהווריאציות של ארבע דוגמאות אלה.
| K M (מיקרומטר) | יא החתול (הים-1) | יא חתול / k M (M -1 • של-1) |
| 0.21 ± 0.04 | 6.90 ± 0.28 | 3.2 ± 0.55 × 10 7 |
טבלה 2. פרמטרים הקינטית של ההתבגרות של טרום SUMO1 ידי SENP1 ידי כמותית סריג ניתוח. סטיית התקן הגיעה מהארבע הדגימות בכל ריכוז מצע.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
טכנולוגית הסריג נעשתה שימוש כדי ללמוד ההתבגרות של טרום SUMO1 ידי SENP1 9. CFP-YFP שמש כזוג סריג וניתוח ratiometric, שהוא היחס של acceptor לפליטה התורמת, שמש ללאפיין את התכונות הקינטיות. עם זאת, אין שיקול של תורם וacceptor העצמי פלואורסצנטי בratiometric המסורתי סריג ניתוח. היחס לא לתאם ישירות עם כמות המצע מעוכל.
כאן אנו מדווחים פתחתי assay סריג מבוסס פרוטאז רגיש מאוד ללמוד הקינטית של ההתבגרות של טרום SU...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
אין ניגודי האינטרסים הכריזו.
תודות
אנו מודים מאוד לויקטור GJ רוג'רס לייעוץ רב ערך. אנו מודים לכל חברים בקבוצת ליאו לעבודה משותפת וקרובה מאוד לעזרה במחקר זה. מחקר זה נתמך על ידי המכונים הלאומיים לבריאות (גרנט AI076504 לJL).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| שם המגיב | חברה | מספר קטלוגים | |
| PCR השני topo קיט | Invitrogen | K466040 | |
| 2xYT | מחקר מוצרי Internationa.l קורפ | X15600 | |
| Ni-נ.ת. ע Agrose | Thermo Scientific | 88222 | |
| Coomassie חיבור (רדפורד) ריג'נט Assay | Thermo Scientific | 23238 | |
| צלחת 384 היטב (תחתית זכוכית) | גריינר | 781892 | |
| FlexStation השני 384 קורא צלחת | התקנים מולקולריים |
מקורות
- Johnson, E. S. Protein modification By SUMO. Annual Review of Biochemistry. 73, 355-382 (2004).
- Gill, G. SUMO and ubiquitin in the nucleus: different functions, similar mechanisms. Genes & Development. 18, 2046-2059 (2004).
- Hay, R. T. SUMO: a history of modification. Molecular Cell. 18, 1-12 (2005).
- Müller, S., Hoege, C., Pyrowolakis, G., Jentsch, S. SUMO, ubiquitin's mysterious cousin. Nature. , 202-210 (2001).
- Hochstrasser, M. SP-RING for SUMO: new functions bloom for a ubiquitin-like protein. Cell. , 5-8 (2001).
- Drag, M., Salvesen, G. S. DeSUMOylating enzymes-SENPs. IUBMB Life. 60, 734-742 (2008).
- Mukhopadhyay, D., Dasso, M. Modification in reverse: the SUMO proteases. Trends in Biochemical Sciences. 32, 286-295 (2007).
- Reverter, D., Lima, C. D. Structural basis for SENP2 protease interactions with SUMO precursors and conjugated substrates. Nature Structural & Molecular Biology. 13, 1060-1068 (2006).
- Shen, L., et al. SUMO protease SENP1 induces isomerization of the scissile peptide bond. Nature Structural & Molecular Biology. 13, 1069-1077 (2006).
- Horton, R., Strachan, E., Vogel, K., Riddle, S. A substrate for deubiquitinating enzymes based on time-resolved fluorescence resonance energy transfer between terbium and yellow fluorescent protein. Analytical Biochemistry. 360, 138-143 (2007).
- Mikolajczyk, J., et al. Small Ubiquitin-related Modifier (SUMO)-specific Proteases: PROFILING THE SPECIFICITIES AND ACTIVITIES OF HUMAN SENPs. Journal of Biological Chemistry. 282, 26217-26224 (2007).
- Kolli, N., Mikolajczyk, J., Drag, M., Mukhopadhyay, D., Moffatt, N., Dasso, M., Salvesen, G., Wilkinson, K. D. Distrubition and paralogue specificity of mammalian deSUMOylating enzymes. Biochem. J. , 335-344 (2010).
- Drag, M., Mikolajczyk, J., Krishnakumar, I. M., Huang, Z., Salvesen, G. S. Activity profiling of human deSUMOylating enzymes (SENPs) with synthetic substrates suggests an unexpected specificity of two newly characterized members of the family. Biochemical Journal. 409, 461(2008).
- Engels, I. H., et al. A time-resolved fluorescence resonance energy transfer-based assay for DEN1 peptidase activity. Analytical Biochemistry. 390, 85-87 (2009).
- Martin, S., Hattersley, N., Samuel, I., Hay, R., Tatham, M. A fluorescence-resonance-energy-transfer-based protease activity assay and its use to monitor paralog-specific small ubiquitin-like modifier processing. Analytical Biochemistry. 363, 83-90 (2007).
- Nguyen, A. W., Daugherty, P. S. Evolutionary optimization of fluorescent proteins for intracellular FRET. Nature Biotechnology. 23, 355-360 (2005).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
