רמות של מולקולת האיתות התאית הדלקתית תחמוצת החנקן (NO) נבדקות בדרך כלל באמצעות מגיב גריס. בפרוטוקול זה, יצרנו בדיקת גריס מותאמת תוך שימוש ברקמת מוח חיה של דרוזופילה על מנת לזהות הפרשת NO בשיטה פשוטה, ניתנת לכימות וניתנת לחזרה רבה.
מאמר שיטה
בדיקה כמותית חדשה של רקמה שלמה של רמות תחמוצת החנקן בתגובה נוירו-דלקתית של דרוזופילה
במאמר זה
סיכום
תקציר
דלקת עצבית היא תגובה חיסונית מולדת מורכבת החיונית לתפקוד בריא של מערכת העצבים המרכזית (CNS). בתנאים רגילים, רשת מורכבת של משררים, גלאים ומפעילים מגיבה במהירות לנזק לנוירונים, זיהום או הפרות חיסוניות אחרות. דלקת זו של תאי מערכת החיסון קשורה קשר הדוק לפתולוגיה של הפרעות ניווניות, כגון מחלת פרקינסון (PD), מחלת אלצהיימר ו-ALS. במצבי מחלה פגומים, דלקת כרונית, שנועדה למזער את הנזק לתאי העצב, עלולה להוביל לעירור יתר של תאי החיסון, ובסופו של דבר לגרום להחמרת התקדמות המחלה. לדוגמה, אובדן נוירונים דופמינרגיים במוח האמצעי, סימן היכר של מחלת פרקינסון, מואץ על ידי הפעלה מוגזמת של התגובה הדלקתית. למרות שהגורם למחלת פרקינסון אינו ידוע ברובו, חשיפה לרעלים סביבתיים הייתה מעורבת בהופעת מקרים ספורדיים. קוטל העשבים פרקווט, למשל, הוכח כגורם לפתולוגיה דמוית פרקינסון במספר מודלים של בעלי חיים, כולל Drosophila melanogaster. כאן, השתמשנו בתגובה החיסונית המולדת השמורה בדרוזופילה כדי לפתח בדיקה המסוגלת לזהות רמות משתנות של תחמוצת החנקן, מולקולת איתות תאים קריטית להפעלת מפל התגובה הדלקתית ומוות ממוקד של תאי עצב. באמצעות נזק עצבי הנגרם על ידי פרקווט, אנו מעריכים את ההשפעה של עלבונות חיסוניים אלה על גירוי נוירו-דלקתי באמצעות שימוש במבחן כמותי חדשני. מוחות שלמים מופקים במלואם מזבובים שנחשפו לנוירוטוקסינים או מגנוטיפים שמעלים את הרגישות לניוון עצבי ואז מודגרים במצע של תרביות תאים. לאחר מכן, באמצעות העקרונות של תגובת הריאגנט של גריס, אנו מסוגלים לזהות שינויים קלים בהפרשת תחמוצת החנקן למצע תרבית התאים, ולמעשה ליצור מודל ראשוני של רקמה חיה בהליך פשוט. התועלת של מודל זה מוגברת על ידי המורכבות הגנטית והמולקולרית החזקה של Drosophila melanogaster, וניתן לשנות בדיקה זו כך שתהיה ישימה לרקמות אחרות של דרוזופילה או אפילו למודלים אחרים של דלקת אורגניזם שלם.
מבוא
דלקת עצבית היא תגובה חיסונית מורכבת שהוכחה כקשורה קשר הדוק לפתולוגיה של מגוון רחב של מחלות, רובן הפרעות ניווניות. בתנאים בסיסיים, רשת רב-גונית זו של תאי חיסון פריפטטיים שומרת על בריאות הרקמות באמצעות תגובתה המהירה לזיהום, פלאק או פציעה1,2. תגובה נוירו-דלקתית של מערכת העצבים המרכזית של היונקים יכולה להיות מופעלת עקב עלבונות קלים, כגון מתח חמצוני תאי הקשור להזדקנות נורמלית, או התקפות גדולות, כגון נזק לתאי עצב המתרחש מחשיפה חריפה לרעלן כימי. כאשר אינדוקציה זו מתרחשת, תאי מעקב פגוציטים המכונים מיקרוגליה מופעלים ונודדים לאתר של נזק תאי עצבי. תאים חיסוניים דמויי נבלות אלה, הדומים לתאי מקרופאגים הקיימים בפריפריה, מתחילים מפל איתות מתוחכם עם הנוירון הפגוע, כמו גם עם אסטרוציטים, התומכים בתאי גליה הפועלים לצד מיקרוגליה לתגובת מיקרוגליה חזקה בדרך כלל3-7. לאחר ההפעלה, המיקרוגליה מתחילה בתהליך של דלקת כדי לעורר את מערכת החיסון ולקדם תיקון רקמות1,8.
בתנאים של עלבון מתמשך, כמו במחלות ניווניות כמו מחלת פרקינסון, מחלת אלצהיימר וטרשת אמיוטרופית צידית, דלקת כרונית גורמת לנזק משמעותי גם לרקמות בריאות. מחקרים אחרונים הראו כי תגובה מתמשכת ואגרסיבית זו של מערכת החיסון עשויה למעשה להוביל לתגובה מעוררת יתר שמחמירה את מצב המחלה במקום לשפר את המצב9-11.
ב-Drosophila melanogaster, התגובה החיסונית המולדת נשמרת היטב מבחינה גנטית. למרות שאין לה רשת חיסונית נרכשת אמיתית, דרוזופילה שומרת על מערכת חיסון מולדת מתוחכמת המכילה סוג של פגוציטים הידועים בשם המוציטים. תאים חיסוניים אלה זוהו בעבר כתאים דמויי מקרופאגים הנודדים לאתר הפציעה12,13, ועוברים פגוציטוזיס במהלך הלם ספטי14, החדרת טפיל15 או זיהום ויראלי16.
חשוב לציין, בדומה למקרופאגים של יונקים, המוציטים פגוציטים מבטאים סינתאז תחמוצת החנקן (NOS) ומייצרים תחמוצת חנקן (NO), מרכיב איתות קריטי של חסינות דרוזופילה 15,16. עם זאת, כל המחקרים הללו הצליחו להדגים תגובות המוציטים רק במהלך ההתפתחות העוברית ובזחלים.
המעבדה שלנו הבחינה בדלקת עצבית חזקה בתיווך המוציטים במוחם של מבוגרים של דרוזופילה, תופעה שלא הייתה ידועה בעבר17. תגובה זו הושרה באמצעות חשיפה לפרקווט הרעיל. מחקרים אפידמיולוגיים שנערכו על ידי המכונים הלאומיים לבריאות זיהו את קוטל העשבים הנפוץ כגורם סיכון פוטנציאלי להופעת מחלת פרקינסון בבני אדם18. מחקר שבדק את הטיפול בפרקוואט במודלים של יונקים כבר אימת את תכונותיו הנוירוטוקסיות והראה כי קוטל העשבים גורם לתסמינים פרקינסוניים, כגון הפרעות מוטוריות ואובדן נוירונים סלקטיבי19-21. בדרוזופילה, טיפול בפרקווט מוביל למגוון רחב של פנוטיפים התנהגותיים פרקינסוניים כמו גם למוות של נוירונים דופמינרגיים התואמים את הפתולוגיה של מחלת פרקינסון22. למרות שהמנגנונים והגורמים הגנטיים הקשורים לתגובה נוירו-דלקתית זו עדיין לא הובהרו במלואם בדרוזופילה, ראינו אינדוקציה משומרת של NOS במהלך ניוון עצבי.
באמצעות שיטה זו, זיהינו בנוסף תגובה נוירו-דלקתית דומה, אם כי פחות דרמטית, באמצעות גנוטיפים מוטנטיים עם רגישות נוירוטוקסית ידועה. מקודד על ידי הגן פונץ', GTP cyclohydrolase הוא החלבון הראשון ומגביל הקצב בביוסינתזה של BH4, הפועל לאחר מכן כקופקטור הכרחי עבור NOS23,24. מוטציית אובדן התפקוד PuZ22 גורמת לירידה בתגובה הדלקתית ולרגישות מוגברת לפרקווט25. בעזרת פרוטוקול זה, הצלחנו לכמת שינויים עדינים יחסית ברמות תחמוצת החנקן הנגרמים על ידי שונות גנטית זו.
כדי לזהות NO בדגימות שלנו אנו משתמשים במגיב גריס, שיטה קולורימטרית מקובלת למדידת רמות NO. מגיב זה מודד בעקיפין את שפע ה-NO היחסי על ידי זיהוי נוכחותם של ניטריטים, אחד משני תוצרי הקצה של ייצור תחמוצת החנקן. פרוטוקולי זיהוי הניטריטים הקיימים באמצעות מגיב גריס יושמו בעיקר לניתוחים במבחנה או בתרבית תאים, כאשר NO מתפזר למדיום התרבית. בתחילה פיתחנו שיטה מבוססת ריאגנטים של גריס לגילוי NOS בראש דרוזופילה גולמיהומוגני 25. עם זאת, מצאנו ששיטה זו משתנה במקצת עם תנאים משתנים, ככל הנראה בשל חוסר היציבות, התגובתיות הגבוהה והריכוז היחסי הנמוך של NO ברקמות ראש שלמות. לכן, ביקשנו לפתח שיטה המבוססת על פרוטוקולי תרבית תאים שתאפשר רגישות ואמינות רבה יותר בכימות פעילות NOS. כאן אנו מתארים שיטה דומה מבחינה רעיונית לזו ששימשה בעבר לאיתור NOS בזחלי דרוזופילה צינוריות מלפיגיות26. בהליך זה, אנו משתמשים במוחות שלמים שנותחו מיד לאחר טיפול ברעלן כדי לגרום לתגובה הדלקתית. לאחר מכן, הדגמנו את הדגימות הללו במדיום תרבית חרקים כדי לשמר את שלמות הרקמה, וכדי לשפר את הרגישות והאמינות של בדיקה מבוססת ריאגנטים של Griess.
אנו צופים כי עם השימוש בכלים הגנטיים המתוחכמים הזמינים, למודל זה יש את היכולת לשמש כלי עזר מבטיח לחקר רשת הדלקת/ניוון עצבי דינמית. עם היכולת לכמת במדויק את ההפעלה והעוצמה היחסית של התגובה הנוירו-דלקתית, בדיקה חדשנית זו יוצרת תרבית רקמה ראשונית המסוגלת לזהות סמנים נוירו-דלקתיים מופרשים. שיטה זו מציעה מודלים של אורגניזמים קטנים של דלקת טכניקה זולה ורגישה מאוד לבדיקה מהירה של דגימות אורגניזם שלם או רקמה חיה היכן שחסרו בעבר.
פרוטוקול
1. חשיפה לפרקווט
- שמור על תרביות זבובי הבדיקה על מדיום תרבית דרוזופילה סטנדרטי ב-25 מעלות צלזיוס בצפיפות תרבית שוות ערך המורכבת מכ-35 נקבות ו-15 זכרים.
- להכנת תאי האכלה, הניחו כמות קטנה של כותנה סופגת בתחתית בקבוקון ריק עם נייר פילטר ישירות מעל הכותנה.
- הרדמת זבובים זכרים בוגרים 3-5 ימים לאחר הרדמה באמצעות תרדמת קרה או CO2. עבור הניסויים המתוארים כאן, השתמש בזכרים של גנוטיפ y w1118.
- להפרדת תרדמת קרה, הקש על בקבוקוני האכלה המכילים זבובים ולאחר מכן הסר במהירות את הפקק והעביר את הזבובים ישירות לבקבוקון נקי וריק, תוך הקפדה על תיוג כראוי.
- לאחר שהזבובים מועברים בהצלחה לבקבוקוני מזון ריקים, הקישו על הבקבוקונים ואז הניחו מיד בדלי קרח למשך 5 דקות או עד שהזבובים נופלים.
הערה: אין לטבול לחלוטין בקבוקון בקרח. זה יכול לגרום למים או לחות להיכנס לבקבוקון ולהטביע את הזבובים. כאמצעי זהירות נוסף, השתמש בקרח טרי ולא בקרח מומס בדלי קרח.
הערה: שימו לב היטב למספר הזבובים הדרושים לכל בדיקה, ובמידת האפשר, הוסיפו זבובים נוספים לכל קבוצה כאמצעי זהירות במקרה של טעות אנוש, למשל זבובים שבורחים במהלך האכלה או העברה. בדיקת זיהוי תחמוצת החנקן, למשל, דורשת 20 מוחות זבובים לכל ערכת דגימה, אז קחו בחשבון את רמת מיומנות הדיסקציה והיעילות בעת האכלה (כלומר טירונים צריכים להגדיר יותר מ-20 זבובים במקרה של שגיאות העברה או נתיחה).
- לאחר הרדמת הזבובים, העבירו כל קבוצה לבקבוקון האכלה מתאים כפי שהוכן לעיל.
- לאחר שהזבובים ערים לחלוטין בבקבוקוני האכלה, הרעיבו אותם למשך שעה וחצי ובינתיים, הכינו פתרונות המתוארים להלן:
- הכינו תמיסת מלאי של 5% סוכרוז (תמיסת בקרה) על ידי הוספת 5 גרם סוכרוז ל-100 מ"ל מים מזוקקים כפולים. מערבבים עד להמסה מלאה ושומרים בטמפרטורה של 4 מעלות צלזיוס
הערה: השתמש בתמיסת מלאי סוכרוז של 5% כממס לכל פתרונות ההזנה הבאים. - הכן תמיסת מלאי פרקווט 10 מ"מ תוך שימוש בסוכרוז 5% כמדלל ומאוחסן ב-4 מעלות צלזיוס. הכן את כל שאר הריכוזים באמצעות דילולים סדרתיים לפי הצורך.
זהירות: פרקווט רעיל ביותר. עיין ב-MSDS להנחיות בטיחות וטיפול/סילוק נאותים. - הכן תמיסות מלאי של 10 מ"מ של N-Nitro-L-ארגינין מתיל אסטר הידרוכלוריד (L-NAME), N-nitro-D-ארגינין מתיל אסטר הידרוכלוריד (D-NAME) תוך שימוש בסוכרוז 5% כמדלל ואחסן בטמפרטורה של 4 מעלות צלזיוס. עבור קוביות של L-NAME או D-NAME עם פרקווט יש לתת כל תרכובת ביחס של 1:1 עם ריכוז פרקווט. הכן את כל שאר הריכוזים באמצעות דילולים סדרתיים לפי הצורך.
הערה: סנן את כל הפתרונות מיד לאחר ההכנה. יש להשתמש במלאי Paraquat, D-NAME ו-L-NAME תוך שבוע מההכנה כדי להבטיח עקביות ניסויית. - פיפטה 150 מיקרוליטר ליום (או פחות בהתאם למשך ההאכלה) של תמיסת ההזנה על נייר הסינון, תוך הקפדה לא להטביע זבובים או לתת לאף אחד לברוח.
- הכינו תמיסת מלאי של 5% סוכרוז (תמיסת בקרה) על ידי הוספת 5 גרם סוכרוז ל-100 מ"ל מים מזוקקים כפולים. מערבבים עד להמסה מלאה ושומרים בטמפרטורה של 4 מעלות צלזיוס
2. בדיקת הישרדות/תמותה
- הגדר תאי האכלה כפי שתואר קודם לכן.
הערה: השתמש לפחות ב-3 שכבות של נייר סינון לכל בקבוקון כדי למנוע התייבשות. - מניחים 10 זבובים זכרים 3-5 ימים לאחר הסיום בכל בקבוקון ומאכילים לפי ההוראות לעיל, תוך היזהרות לא לתת לנייר הסינון להתייבש למשך הלילה.
הערה: שמור על בקבוקונים בטמפרטורת החדר, הרחק מאור שמש ישיר כדי למנוע אידוי מואץ של תמיסות. - החל מהיום שלמחרת (המכונה "היום הראשון"), מספר שיא של זבובים מתים לבקבוקון פעמיים ביום במשך 10 ימים רצופים.
הערה: לווסת הן את הניקוד והן את ההאכלה לשעות ספציפיות בכל יום כדי להפחית את השונות ולספק עקביות גבוהה יותר. - חשב הישרדות ממוצעת באמצעות לפחות שלושה שכפולים בלתי תלויים של כל הקבוצות.
3. ניתוח מוחות זבובים בוגרים ודגירה
- לפני הנתיחות, פיפטה 50 מיקרוליטר של מדיום החרקים של גרייס למספר הבארות המתאים (באר אחת לכל סט דגימה + אחת עבור ה"ריק"/בקרה) בצלחת מיקרוטיטר של 96 בארות ותווית מתאימה. מכסים במכסה צלחת עד לשימוש.
הערה: לחלופין, ניתן להשתמש גם בצינורות צנטריפוגה סטריליים אם מעדיפים. - זבובי הרדמה של קבוצת דגימה אחת באמצעות תרדמת קרה כמתואר בשלבים 1.3.1-1.3.2.
- לאחר שהזבובים מורדמים לחלוטין, הניחו מספר זבובים על שקופית מיקרוסקופ
הערה: התחל עם תת-קבוצה קטנה של זבובים אם אינך מנוסה בדיסקציות. - ערפו את ראשי הזבובים תחת מיקרוסקופ דיסקציה באמצעות מלקחיים ולהב כירורגי או שני מלקחיים, והשליכו גופות זבובים בסיום.
- השתמש בכמות קטנה של PBS כחוצץ דיסקציה; יש להימנע מייבוש.
- חלץ את המוח המלא בשיטה של Williamson & Hiesinger (2010)27, תוך הסרה זהירה של חלקיקי ציפורן וכל רקמה שאינה מוחית (למשל רקמת פיגמנט בעין) (ראה איור 1).
- העבירו את המוח המנותח לבאר המסומנת כראוי וחזרו על הפעולה עד שיש מינימום של 20 מוחות לבאר.
- שמור את הצלחות על קרח במהלך תקופת הנתיחה ואל תעלה על יותר מ-20-30 דקות זמן כולל בין תחילת החיתוך לתחילת הבדיקה.
הערה: אפשר להשתמש ביותר מ-20 מוחות כל עוד לכל קבוצה יש את אותו מספר בכל באר. המספר המינימלי של מוחות להשגת קריאה מדויקת עשוי להשתנות (עיין בסעיף דיון לפרטים נוספים). - לאחר השלמת ערכת העבודה, אפשר למוח לדגור במשך 6 שעות ב-25 מעלות צלזיוס עם טלטול קל.
- בצע את שלבים 1.2-1.6 עבור כל הקבוצות הנותרות.
הערה: רשום והתאם את זמן הסיום של הדגירה בהתאם להפרשים בין מועד השלמת כל ערכת דגימה.
4. הכנה בתקופת הדגירה
- הכן את מגיב ה-Modified Griess לפי הוראות היצרן (ראה טבלה) ושמור בחושך עד לשימוש. כמות המגיב הדרושה תלויה בכמות הדגימות. לדוגמה, המגיב של גריס יתווסף ביחס של 1:1 למדיום גרייס (שלב 5.5). לכן, יש להכין 50 מיקרוליטר לערכת דגימה + 50 מיקרוליטר לבקרה הריקה.
- בנה עקומה סטנדרטית של ניטריט באמצעות נתרן ניטריט בדילול סדרתי שנע בין 0.78125-100 מ"מ ניטריט לסך של 8 ריכוזים.
הערה: זה צריך להיעשות עבור כל ניסוי כדי להבטיח עקביות ודיוק בריכוז הדגימה ובפעילות המגיב של גריס. - בנוסף, הכינו ותייגו צינורות צנטריפוגה סטריליים של 0.5 מ"ל, שני צינורות לכל קבוצת טיפול ושניים לביקורת.
5. זיהוי רמות ניטריט
- לאחר סיום תקופת הדגירה, העבירו את מדיום גרייס (לפחות 45 מיקרוליטר) מבארות המיקרוטיטר לקבוצה הראשונה של צינורות צנטריפוגה המתאימים לכל קבוצה.
הערה: כפי שצוין קודם לכן, הקפד לקחת בחשבון את ההבדלים בתקופות הדגירה עקב הזמן שלוקח בין כל קבוצה של נתיחות. - שלב אופציונלי: הוסף ניטראט רדוקטאז ו-NADPH בשלב זה כדי להמיר חנקות לניטריטים. (שלב זה לא בוצע בתוצאות המוצגות)
הערה: ניתן לבצע בדיקת חנקה/ניטריט במידת הצורך עם כמות גדולה של סופרנטנט דגימה כמתואר בערכות הבדיקה. - צנטריפוגה בעדינות (בסביבות 8,175 x גרם) למשך 2 דקות כדי לגלול חלקיקים במוח או ברקמות שאולי נשאבו מהבארות.
- פיפטה 30 מיקרוליטר של הסופרנטנט מהסט הראשון של צינורות הצנטריפוגה לתוך הסט השני של הצינורות המתאימים, תוך הקפדה לא לשבש את הגלולה לאחר סיבוב הדגימות.
- הוסף מגיב Griess ביחס של 1:1, דגירה למשך 5-10 דקות ובדוק באמצעות ספקטרופוטומטר NanoDrop בספיגה של 548 ננומטר תוך 30 דקות.
הערה: ניתן לאמוד דגימות גם באמצעות קורא מיקרו-פלטות באורך גל ספיגה של 540 ננומטר עם אורך גל ייחוס של 620 ננומטר. - חזור על כל קריאה לפחות שלוש פעמים וממוצע את הקריאות.
הערה: הקפד "לרוקן" את המכונה בין כל 6-10 קריאות ולפני השלמתה, הפעל את הפקד הריק (מגיב Grace's Medium plus Griess ללא מוח) כדגימה לשימוש כסטיית תקן. - השתמש בעקומת הניטריט הסטנדרטית שנוצרה בשלב 4.2 כדי לחשב את רמות הניטריט היחסיות של כל דגימה.
- כדי לחשב ריכוזים לא ידועים, ראשית שרטט את ערכי הריכוזים הידועים מהעקומה הסטנדרטית באמצעות ספיגה (כלומר צפיפות אופטית) על ציר y וריכוז על ציר x.
- לאחר שכל ערכי העקומה הסטנדרטיים מופיעים בגרף, מצא את השיפוע של קו ההתאמה הטוב ביותר ופתור את המשוואה עבור x.
הערה: אם דילולים סדרתיים נעשים כראוי, קו ההתאמה הטוב ביותר צריך להיות ליניארי או קרוב מאוד אליו. אם זה לא המקרה, שחזר את העקומה הסטנדרטית. אם הבעיות נמשכות, בדוק את כל הפתרונות, המדיה והריאגנטים לתפוגה וודא שהציוד פועל כראוי ובטווח הזיהוי שלו. - לאחר מכן, פשוט החלף את ערכי הספיגה ב-y ופתור עבור x, המייצג ריכוז.
למידע נוסף על השימוש בציוד NanoDrop, עיין ב-Desjardins et al. 2009 ו-Desjardins & Conklin, 201028,29.
6. כתם מערבי
- האכילו 30 זבובים לכל מצב כמתואר לעיל וערפו ראשים, רצוי באמצעות חנקן נוזלי ומערבולת.
- הומוגניזציה של ראשים שלמים על קרח במאגר RIPA של 60 מיקרוליטר עם 2 מ"מ דיתיותרייטול (DTT) וקוקטייל מעכב פרוטאז 1x שנוסף ממש לפני השימוש.
- סובב דגימות למשך 5 דקות ב-8,175 x גרם ב-4 מעלות צלזיוס.
- העבירו את הסופרנטנט לצינורות צנטריפוגות חדשים.
- מערבבים דגימות בעדינות ופיפטה 17 מיקרוליטר של סופרנטנט לתוך צינורות צנטריפוגה המכילים 6.5 מיקרוליטר 4x מאגר דגימת LDS ו-2.5 מיקרוליטר 500 מ"מ DTT.
הערה: הקפיא את הדגימה הנותרת בחנקן נוזלי ומאוחסן ב-20 מעלות צלזיוס עד לשימוש. - מערבבים היטב דגימות ומחממים בחום של 70 מעלות צלזיוס למשך 10 דקות, מערבבים פעם אחת באמצע הדגירה.
- בזמן החימום, הרכיבו מכשיר הפעלה של אלקטרופורזה של ג'ל פוליאקרילאמיד (PAGE) באמצעות מיניג'ל 4-12% NuPage Bis-Tris, מאגר ריצה MOPS SDS עם נוגד חמצון של 500 מיקרוליטר בתא הפנימי.
- דגימות סיבוב מהירות ומניחים להתקרר.
- טען 25 מיקרוליטר לכל נתיב.
- הפעל את אלקטרופורזה הג'ל ב-200 וולט על קרח או ב-4 מעלות צלזיוס למשך 45 דקות או עד להשלמת הג'ל.
- לאחר השלמת האלקטרופורזה, העבירו חלבונים מופרדים מהג'ל לממברנות הניטרוצלולוזה באמצעות ערימות העברה של iBlot וזהו אות באמצעות ערכת זיהוי כתמים מערביים.
הערה: הנוגדנים המשמשים הם כדלקמן: נוגדנים ראשוניים עכבר α-nNOS (1:250), עכבר α-סינטקסין (1:200); נוגדנים משניים (1:250) מסופקים בערכת זיהוי כתמים מערביים (עכבר). - זיהוי אות כימילומינסנט באמצעות מערכת הדמיה של כתם מערבי או סרט רנטגן.
הערה: ניתן להשתמש בכל שיטות זיהוי וכימות סטנדרטיות של כתמי חיסון לניתוח כתמים.
תוצאות
הוכח במודלים רבים של בעלי חיים, כגון עכברים19, חולדות20 וזבובי פירות22, כי Paraquat גורם לניוון נוירולוגי העולה בקנה אחד עם פתולוגיה דמוית פרקינסון. דיווחנו בעבר כי האנטיביוטיקה נוגדת הדלקת minocycline, כאשר היא ניתנת יחד עם paraquat, מובילה להישרדות ממושכת, להפחתה בייצור של רדיקלים חופשיים של חמצן (reactive oxygen species) ולהצלת נוירונים דופמינרגיים ממוות25. לפיכך, מכיוון ש-minocycline פועלת לדיכוי דלקת, התחלנו לחקור את NOS, חלבון מפתח בהפעלת התגובה הדלקתית, ואת תפקידו בוויסות רעילות ה-paraquat.
בוצע ניסוי של עקומת רעילות לפאראקוואט (paraquat) כדי לקבוע מינון קטלני יעיל וטווח טיפול רעיל, תוך שימוש בריכוזי פאראקוואט שבין 1.25 ל-10 mM (איור 2A). בחנו גם את ההשפעות של ריכוזי פאראקוואט של 20 mM ו-40 mM, אך מצאנו שהרעילות הייתה חריפה מדי בריכוזים גבוהים אלו כדי להעריך במדויק את התגובות התאיות למגורר עקה חמצונית זה, ולכן לא כללנו את התוצאות עבור ריכוזים אלו בדוח זה. באמצעות L-NAME, מעכב תחרותי של NOS, ו-D-NAME, האיזומר הבלתי פעיל של NAME, טיפלנו במקביל זבובים זכרים בוגרים בפאראקוואט ובאחד מאיזומרי ה-NAME. טיפול משולב של זבובים בפאראקוואט וב-L-NAME הוביל להצלה משמעותית של קיצור תוחלת החיים שנגרם כתוצאה מבליעת פאראקוואט, בעוד שזבובים שקיבלו טיפול משולב של פאראקוואט ו-D-NAME לא הראו שיפור בהישרדות (איור 2B), מה שמעמיק את ההשערה שדיכוי דלקת באמצעות עיכוב של NOS שיפר את הישרדותם של זבובים שטופלו בפאראקוואט.
כאישוש נוסף לתגובה ל-paraquat המתווכת על ידי NOS, זיהינו שינויים ברמות חלבון ה-NOS מיד לאחר חשיפה ל-paraquat. רמות חלבון ה-NOS עלו באופן תלוי בריכוז ה-paraquat (איור 3A). כאשר טיפלנו בזבובים ב-10 mM paraquat למשכי חשיפה שנעו בין 6-30 שעות, צפינו עלייה ראשונית, ולאחר מכן ירידה עם הגברת זמן החשיפה (איור 3B), ממצא התואם לדפוסי רמות הניטריט שנצפו בגרסה שלנו של בדיקת ה-Griess (איור 5B). תוצאות אלו עקביות עם הדיווחים שלנו כי טיפול ב-paraquat גורם להשראה של NOS וכי עיכוב של NOS או טיפול ב-L-NAME או ב-minocycline מעניקים הגנה חלקית17,25.
איור 4A מדגים קשר ליניארי בין העלייה בריכוז ה-paraquat לבין עוצמת התגובה הדלקתית, כפי שהוגדרה על ידי הפרשה וזיהוי של NO. ברמות בסיסיות, מוטנטים הטרוזיגוטים של Punch הפרשו רמות נמוכות מעט יותר של NO, השונות הייתה בלתי ניתנת להבחנה באופן שניתן לקבוע באמצעות שיטות זיהוי קודמות. כאשר הוזנו ב-paraquat, נצפתה עלייה בולטת ברמות ה-NO במוטנט Punch, אך זו הייתה נמוכה משמעותית מזו של זבובים מסוג wildtype שטופלו (איור 4B). ניתן לכמת את הערכים היחסיים של זבובים מסוג wildtype ושל Punch באופן מדויק וניתן לשחזור, אף שהשונות ברמות ללא טיפול הייתה עדינה ביותר.
בעבודה עם רעלים או כימיקלים, חיוני לבסס הן עקומת זמן-חשיפה והן עקומת רעילות מבוססת ריכוז, שכן תנאים אלו עשויים לשנות באופן דרמטי את רגישות הבדיקה. לדוגמה, טיפול ב-5 mM paraquat מוביל לזיהוי מקסימלי של NO לאחר 24 שעות חשיפה (איור 5A), בעוד שחשיפה ל-10 mM paraquat הובילה לאינדוקציה מהירה יותר (רמות מקסימליות לאחר 12 שעות), אך גם לדעיכה מהירה יותר של הפעילות במהלך חשיפות ממושכות (איור 5B). למרות שריכוז גבוה יותר עם אינדוקציה מהירה עשוי להיראות עדיף, תגובה מקסימלית מאיצה את מותם של הנוירונים וייתכן שגם של ההמוציטים, עד לנקודה שבה השחזור עשוי להפוך לקשה.
מולקולות NO אינן יציבות והן בעלות תגובתיות גבוהה. לפיכך, בדיקה מוצלחת חייבת לכלול תנאי דגירה המספקים איזון אופטימלי בין השראה מתמשכת של NOS לבין קצב תחלופה מהיר של NO. כדי להגדיר את תנאי הדגירה האופטימליים, הערכנו את השפעת משך הזמן שבו הודגאו מוחות מנותחים במצע התרבית לפני הוספת ריאגנט גריס (Griess). מצאנו שדגירה של 6 hr בטמפרטורת החדר הניבה רמות ניטריט מקסימליות בתגובת הגריס העוקבת (Figure 5C). אנו צופים כי עשויים להידרש שינויים בתקופת הדגירה כדי למקסם את הגילוי עבור מודלים שונים של דלקת. קביאה מדוקדקת של כל הפרמטרים האופטימליים עבור האורגניזם, הגנוטיפ והרקמה הנבדקים תהיה חיונית להשגת תוצאות אמינות ומדויקות, מכיוון שהתהליך הוא דינמי ביותר. בפרט, צפוי כי וריאנטים גנטיים ומודלים של ביטוי טרנסגן ידרשו אופטימיזציה משמעותית, במיוחד ביחס לשלב ההתפתחותי או לגיל המבוגרים.
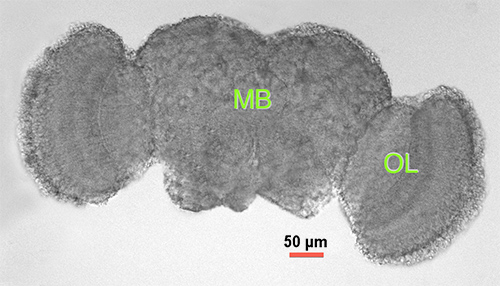
איור 1. מוח של Drosophila בוגר. מיקרוסקופיה של אור של מוח זכר בוגר מבודד 2-3 ימים לאחר הבקיעה. MB = מוח אמצעי (קורטקס מרכזי), OL = אונה אופטית.
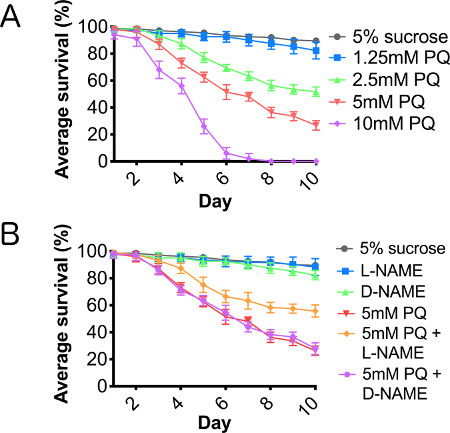
איור 2. פאראקוואט גורם להפחתה תלוית-מינון באורך החיים, המתווכת על ידי nitric oxide synthase. זבובים זכרים מסוג wild type שהוזנו ב (A) 5% סוכרוז (ביקורת), ודילול סדרתי של פאראקוואט בריכוזים שבין 1.25-10 mM ב-5% סוכרוז, ו (B) הוזנו בפאראקוואט יחד עם L-NAME או D-NAME למשך 10 ימים רצופים. N = 3 קבוצות של 10. פסי שגיאה = SEM.
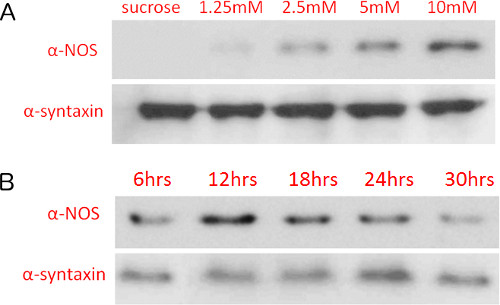
איור 3. רמות חלבון nitric oxide synthase עולות עם ריכוז ה-paraquat ומשך החשיפה. זיהוי באמצעות Immunoblot של רמות nitric oxide synthase בזבובים שטופלו בריכוזי (A) paraquat משתנים (חשיפה של 12 שעות) וב-(B) 10 mM paraquat עם משכי חשיפה משתנים. רמות החלבון זוהו על ממברנות ניטרוסלולוז באמצעות כמילומינסנציה וחשיפה לסרט רנטגן.
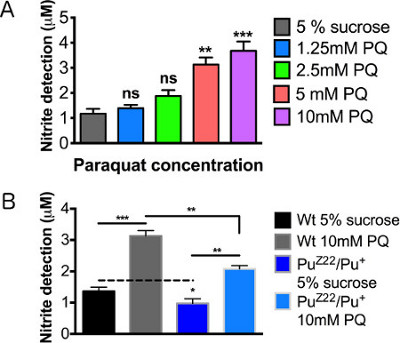
איור 4. רמות זיהוי תחמוצת חנקן לאחר חשיפה לפאראקווט. זבובים זכרים מסוג בר (WT) 2-3 ימים לאחר הבקיעה נבדקו לאחר ההנאה של 12 שעות. (A) עקומת ריכוזים של ריכוזי פאראקווט. (B) מוטנטים הטרוזיגוטים זכרים של Punch שהוזנו בסוכרוז כביקורת וב-10mM פאראקווט. N = 20 מוחות/קבוצה. התוצאות מייצגות 3 חזרות לכל קבוצה. פסי השגיאה = SEM. ניתוחים סטטיסטיים בוצעו באמצעות one-way ANOVA עם מבחן Post-test של Dunnett's Multiple Comparison (*, p < 0.05, **, p < 0.01, ***, p < 0.001).

איור 5. אופטימיזציה של זיהוי ייצור תחמוצת החנקן על ידי שינוי משך החשיפה לפאראקוואט וזמן דגירת הרקמה. רמות יחסיות של תחמוצת החנקן במוח של זכרים 2-3 ימים לאחר הבקיעה בעקבות טיפול של 12 hr ב-(A) 5 mM פאראקוואט ו-(B) 10 mM פאראקוואט. (C) עקומת NO תוך שימוש בתקופות דגירה משתנות של רקמה לאחר האכלה ב-10 mM פאראקוואט למשך 12 hr. ערכי המובהקות חושבו ביחס ל following: (A, B) ביקורות של 5% סוכרוז לכל זמן חשיפה (לא מופיע בגרף), (C) ביקורות של 5% סוכרוז לכל זמן דגירה (לא מופיע בגרף). N = 20 מוחות/קבוצה. התוצאות מייצגות 3 חזרות לכל קבוצה. פסי שגיאה = SEM. ניתוחים סטטיסטיים בוצעו באמצעות one-way ANOVA עם מבחן פוסט-הוק של Dunnett's Multiple Comparison (*, p<0.05, **, p<0.01, ***, p<0.001).
דיון
שיטה זו, למרות שהיא פשוטה בגישה, מספקת שיטה חסכונית, ניתנת לחזרה ורגישה במיוחד לכימות רמות של דלקת עצבית בתיווך NOS. כפי שמוצג בסעיף התוצאות, ישנם משתנים רבים שניתן להתאים כדי לשפר או לייעל את התגובה במודלים או אורגניזמים אינדוקציה שונים. עם זאת, מכיוון שמדובר במערכת רגישה ביותר, משתנים אלה עשויים גם לגרום לתוצאות משתנות מאוד אם כל ההיבטים של הפרוטוקול לא יטופלו בזהירות. כאשר אנו בודקים לראשונה באמצעות מודל כלשהו, אנו ממליצים להגדיר את הפרמטרים על ידי בדיקת משתנים, הכוללים ריכוז כימי (איור 4A), משך החשיפה (איורים 5A ו-5B) ומשך הדגירה (איור 5C). שימו לב למשתנים אחרים, כגון מספר דגימות המוח/רקמות הדרושות להשגת סף זיהוי ועקביות, גם כאשר מיישמים שיטה זו על מודלים דומים של דרוזופילה. בנוסף, במודלים גנטיים תלויי גיל של דלקת, יהיה צורך באופטימיזציה ממושכת של נקודת הזמן.
כפי שצוין לעיל, בשל האופי הרגיש של הבדיקה, חוסר עקביות בפרוטוקול יכול להניב תוצאות לא אמינות. עם זאת בחשבון, כל הציוד והחומרים עוקרו לפני השימוש. בשל זמן הדגירה הקצר, לא נוספה אנטיביוטיקה למצע התרבית בניסויים אלה. עם זאת, אם הפרוטוקול מותאם לזמני דגירה ארוכים יותר או אם נצפתה צמיחת חיידקים בתרביות או במדיה, יש להוסיף אנטיביוטיקה טיפוסית לתרבית כגון פניצילין-סטרפטומיצין ולעקר מחדש את הציוד. כמו בכל ניסוי טיפול כימי, יש לנקוט משנה זהירות כדי להבטיח שכל הקבוצות גדלות בתנאים מבוקרים היטב, מותאמים למין ולגיל, וכל הקבוצות מקבלות בדיוק את אותם תנאי האכלה. כמה תנאי האכלה לדוגמה שיש לקחת בחשבון כוללים שינויים בריכוזים, זמינות וגישה למקור האכלה, משך ההאכלה והשעה ביום שבה ההאכלה ניתנת. רשומות מפורטות עבור כל תנאי הניסוי ותשומת לב רבה לדפוסי ההזנה הטבעיים של המודל שלך יעזרו למזער את השונות. אם משתמשים בזנים מוטנטיים או טרנסגניים המשפיעים על מעגלים עצביים או דפוסי התנהגות, בקרה חשובה תכלול ניטור התנהגות האכילה.
שוב, בעוד שפרוטוקולים דומים זמינים בתרבית תאים ובליזטים, יתרון מרכזי אחד של שיטה זו הוא ששלמות הרקמה נשמרת, ולכן מאפשרת כמעט לכל מערכות היחסים התאיות במוח להישאר שלמות. מערכת זו מייצגת מצב טבעי יחסית, in vivo של איתות נוירו-דלקתי והפרשה תאית. טכניקה זו, שהוקמה בדרוזופילה, ניתנת להתאמה בקלות לאורגניזמים קטנים אחרים, ואינה מוגבלת למערכת העצבים המרכזית, כפי שהודגם על ידי יישום דומה לאיתות NO במודל צינורית מלפיגי לתפקוד כליות26. היתרון המשמעותי ביותר של פרוטוקול זה הוא היכולת לתפעל ולהתאים את הבדיקה הזו כך שתתאים לצרכים ולאינטרסים של החוקר או מערכת המודל.
באמצעות שימוש בגישות כימיות-גנטיות משולבות, לבדיקה זו יש פוטנציאל לשפר משמעותית את יכולתן של מערכות מודל קטנות לחקור את המנגנונים, המרכיבים הגנטיים והמודולטורים הכימיים של דלקת.
גילויים
המחברים מצהירים שאין אינטרסים פיננסיים מתחרים.
תודות
אנו מודים לד"ר גאי ולד"ר קים קולדוול על השימוש בספקטרופוטומטר NanoDrop שלהם במהלך פיתוח הבדיקה הזו ולג'יי גאווין דייגל על הערותיו והצעותיו הביקורתיות. פיתוח שיטה זו מומן על ידי מענק מהמכונים הלאומיים לבריאות (NS-078728) ל-J.M.O.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Feeding Chambers | |||
| Empty Drosophila בקבוקון | Genesee Scientific | #32-116 | |
| כותנה | ניתן להשתמש בכל מוצר סטנדרטי. | ||
| נייר סינון | Fisher | #09-802-1B | |
| חשיפה לפרקווט | |||
| Sucrose | Sigma-Aldrich | #S0389 | |
| Paraquat (methyl viologen dichloride hydrate) | Sigma-Aldrich | #856177 | רעיל. יש לטפל בזהירות ובמסגרת הנחיות MSDS |
| L-NAME (N-Nitro-L-arginine methyl ester hydrochloride) | סיגמא-אולדריץ' | #N5751 | |
| D-NAME (N-Nitro-D-arginine methyl ester hydrochloride) | Sigma-Aldrich | #N4770 | |
| ניתוח מוחות זבובים בוגרים ודגירה | |||
| Graceניתן להחליף את מדיום החרקים | Invitrogen | #11605-094 | Grace's Medium גם ב-Sf-900 II SFM או Sf-900 III SFM Medium לעקביות גבוהה יותר של אצווה לאצווה. |
| צלחת 96 באר | קורנינג | #3596 | ניתן להשתמש בכל מוצר סטנדרטי. |
| שקופית | ניתן להשתמש בכל מוצר סטנדרטי. | ||
| להב כירורגי | Feather | #0197 | ניתן להשתמש בכל מוצר סטנדרטי. |
| פינצטה רפואית 5 | Dumont | EMS #72877-D | ניתן להשתמש בכל מוצר סטנדרטי. |
| 10x PBS buffer | OmniPur | #6508 | |
| זיהוי רמות ניטריט | |||
| Modified Griess reagent | Sigma-Aldrich | #4410 | |
| נתרן ניטריט | סיגמא-אולדריץ' | #S2252 או #237213 | |
| ערכת בדיקת חלבון | Bio-Rad | 500-0001 | |
| קובטות | ניתן להשתמש בכל מוצר סטנדרטי. | ||
| ניטראט רדוקטאז | אופציונלי | ||
| NADPH | אופציונלי | ||
| Western Blot Analysis | |||
| RIPA מאגר ליזה | אמרסקו | 97063-270 | |
| דיתיותרייטול (DTT) - חומר מפחית | Novex | B0009 | |
| קוקטייל מעכב פרוטאז אמרסקו | 97063-082 | ||
| 4x LDS מאגר דגימה | Novex | B0007 | |
| Precast 4-12% Bis-Tris מיניג'ל | Novex | BG04125BOX | |
| MOPS SDS מאגר ריצה | Novex | B0001 | |
| נוגד חמצון | NuPage | NP0005 | |
| iBlot Transfer Stacks (Nitrocellulose) | Invitrogen | IB301002 | |
| כתם מערבי ערכת זיהוי | Invitrogen | IB711002 | |
| עכבר α-nNOS | BD Biosciences | 611853 | |
| עכבר α-syntaxin | DSHB | 8C3 |
מקורות
- Gehrmann, J., Matsumoto, Y., Kreutzberg, G. W. Microglia: Intrinsic immuneffector cell of the brain. Brain Res. Rev. 20, 269-287 (1995).
- Dissing-Olesen, L., et al. Axonal lesion-induced microglial proliferation and microglial cluster formation in the mouse. Neuroscience. 149, 112-122 (2007).
- Aloisi, F., Penna, G., Cerase, J., Menendez Iglesias, B., Adorini, L. IL-12 production by central nervous system microglia is inhibited by astrocytes. J. Immunol. 159, 1604-1612 (1997).
- Vincent, V. A., Tilders, F. J., Van Dam, A. M. Inhibition of endotoxin-induced nitric oxide synthase production in microglial cells by the presence of astroglial cells: a role for transforming growth factor beta. Glia. 19, 190-198 (1997).
- Rohrenbeck, A. M., et al. Upregulation of COX-2 and CGRP expression in resident cells of the Borna disease virus-infected brain is dependent upon inflammation. Neurobiol. Dis. 6, 15-34 (1999).
- Walsh, D. T., Perry, V. H., Minghetti, L. Cyclooxygenase-2 is highly expressed in microglial-like cells in a murine model of prion disease. Glia. 29, 392-396 (2000).
- Aloisi, F., Serafini, B., Adorini, L. Glia-T cell dialogue. J. Neuroimmunol. 107, 111-117 (2000).
- Minghetti, L., Levi, G. Microglia as effector cells in brain damage and repair: focus on prostanoids and nitric oxide. Prog. Neurobiol. 54, 99-125 (1998).
- Mrak, R. E., Griffin, W. S. T. Glia and their cytokines in progression of neurodegeneration. Neurobiol. Aging. 26, 349-354 (2005).
- Zhang, W., et al. Aggregated alpha-synuclein activates microglia: a process leading to disease progression in Parkinson's disease. FASEB J. 19, 533-542 (2005).
- Beers, D. R., et al. Neuroinflammation modulates distinct regional and temporal clinical responses in ALS mice. Brain Behav. Immun. 25, 1025-1035 (2011).
- Wood, W., Faria, C., Jacinto, A. Distinct mechanisms regulate hemocyte chemotaxis during development and wound healing in Drosophila melanogaster. J. Cell Biol. 173, 405-416 (2006).
- Babcock, D. T., et al. Circulating blood cells function as a surveillance system for damaged tissue in Drosophila larvae. Proc. Natl. Acad. Sci. U.S.A. 105, 10017-10022 (2008).
- Vlisidou, I., et al. Drosophila embryos as model systems for monitoring bacterial infection in real time. PLoS Pathog. 5, e1000518(2009).
- Foley, E., O'Farrell, P. H. Nitric oxide contributes to induction of innate immune responses to gram-negative bacteria in Drosophila. Genes Dev. 17, 115-125 (2003).
- Costa, A., Jan, E., Sarnow, P., Schneider, D. The Imd pathway is involved in antiviral immune responses in Drosophila. PloS One. 4, e7436(2009).
- Daigle, J. G. Integrated microglial-like neuroinflammatory and hypoxia responses in a Drosophila model for Parkinson's disease. , in preparation Forthcoming.
- Tanner, C. M., Kamel, F., Ross, G. W., Hoppin, J. A., Goldman, S. M., Korell, M., Marras, C., Bhudhikanok, G. S., Kasten, M., et al. Rotenone, Paraquat and Parkinson's Disease. Environ. Health Perspect. 119 (6), 866-8672 (2011).
- Manning-Bog, A. B., McCormack, A. L., Li, J., Uversky, V. N., Fink, A. L., Di Monte, D. A. The herbicide paraquat causes up-regulation and aggregation of alpha- synuclein in mice: paraquat and alpha-synuclein. J. Biol. Chem. 277, 1641-1644 (2002).
- Ossowska, K., Wardas, J., Smialowska, M., Kuter, K., Lenda, T., Wieronska, J. M., Zieba, B., Nowak, P., Dabrowska, J., Bortel, A., et al. A slowly developing dysfunction of dopaminergic nigrostriatal neurons induced by long-term paraquat administration in rats: An animal model of preclinical stages of Parkinson's disease. Eur. J. Neurosci. 22, 1294-1304 (2005).
- McCormack, A. L., et al. Role of oxidative stress in paraquat-induced dopaminergic cell degeneration. J. Neurochem. 93, 1030-1037 (2005).
- Chaudhuri, A., et al. Interaction of genetic and environmental factors in a Drosophila parkinsonism model. J. Neurosci. 27, 2457-2467 (2007).
- Krishnakumar, S., Burton, D., Rasco, J., Chen, X., O'Donnell, J. Functional interactions between GTP cyclohy- drolase I and tyrosine hydroxylase in Drosophila. J. Neurogenet. 14 (1), 1-23 (2000).
- Foxton, R. H., Land, J. M., Heales, S. J. R. Tetrahydro- biopterin availability in Parkinson's and Alzheimer's disease; potential pathogenic mechanisms. Neurochem. Res. 32 (4-5), 751-756 (2007).
- Inamdar, A. A., Chaudhuri, A., O'Donnell, J. The Protective Effect of Minocycline in a Paraquat-Induced Parkinson's Disease Model in Drosophila is Modified in Altered Genetic Backgrounds. Parkinson's Disease. 2012, 938528(2012).
- Kean, L., Cazenave, W., Costes, L., Broderick, K. E., Graham, S., Pollock, V. P., Davies, S. A., Veenstra, J. A., Dow, J. A. Two nitridergic peptides are encoded by the gene capability in Drosophila melanogaster. Am. J. Phys. Reg. Integr. Comp. Phys. 282, R1297-R1307 (2002).
- Williamson, W. R., Hiesinger, P. R. Preparation of Developing and Adult Drosophila Brains and Retinae for Live Imaging. J. Vis. Exp. (37), (2010).
- Desjardins, P., Hansen, J. B., Allen, M. Microvolume Protein Concentration Determination using the NanoDrop 2000c Spectrophotometer. J. Vis. Exp. (33), (2009).
- Desjardins, P., Conklin, D. NanoDrop Microvolume Quantitation of Nucleic Acids. J. Vis. Exp. (45), (2010).
הדפסות חוזרות והרשאות
