פרטים מוצגים על איך מיפוי QTL עם גנום שלם רצף גנטי מבוסס ניתן להשתמש כדי לזהות הגן עמידות התרופה ב Toxoplasma gondii וכיצד ניתן לאמת זאת עם מערכת CRISPR / Cas9 כי ביעילות עריכת יעד גנומי, במקרה זה גן ההתנגדות לסמים.
מאמר שיטה
מיפוי QTL ו CRISPR / Cas9 עריכה לזהות ג 'ין ההתנגדות התרופה ב
במאמר זה
סיכום
תקציר
הידע המדעי קשור באופן מהותי לטכנולוגיות ולשיטות הקיימות. מאמר זה יציג שתי שיטות שאפשרו זיהוי ואיתור של הגן עמידות התרופה בטפיל Apicomplexan Toxoplasma gondii , השיטה של מיפוי כמותי לוקוס (QTL) באמצעות מפת גנום שלם רצף (WGS) מבוסס על השיטה של אשכולות באופן קבוע Interspaced קצר Palindromic חוזר (CRISPR) / Cas9 מבוסס הגן עריכה. הגישה של מיפוי QTL מאפשרת לבחון אם יש מתאם בין אזור גנומי לפנוטיפ. שני מערכי נתונים נדרשים להריץ סריקת QTL, מפה גנטית המבוססת על צאצאיו של צלב רקומביננטי ופנוטיפ שניתן לכמת אותו בכל אחד מצאצאי הצלב. מערכי נתונים אלה מעוצבים אז כדי להיות תואמים לתוכנות R / qtl שיוצרים סריקת QTL כדי לזהות לוקוסים משמעותיים עם הפנוטיפ. למרות שזה יכול לצמצם מאוד את החיפוש wאינדו של מועמדים אפשריים, אזורים QTLs טווח המכיל מספר גנים שממנו הגן הסיבתי צריך להיות מזוהה. לאחר WGS של הצאצאים היה קריטי לזהות את המוטציה סיבתית התנגדות המוטציה ברמת הגן. לאחר זיהו, המוטציה המועמד ניתן לאמת על ידי מניפולציה גנטית של טפילים רגישים לסמים. השיטה הפשוטה והיעילה ביותר לשנות גנטית T. gondii היא מערכת CRISPR / Cas9. מערכת זו מורכבת רק 2 מרכיבים מקודדים על פלסמיד אחד, RNA מדריך יחיד (gRNA) המכיל רצף 20 BP המשלימים את היעד הגנומי ואת endonuclease Cas9 שיוצר הפסקה כפולה גדיל DNA (DSB) על המטרה, תיקון אשר מאפשר הוספה או מחיקה של רצפים סביב אתר הפסקה. מאמר זה מספק פרוטוקולים מפורטים להשתמש CRISPR / Cas9 מבוסס כלי עריכה הגנום כדי לאמת את הגן האחראי על עמידות sinefungin ולבנות טפילים מהונדס.
מבוא
טווח המארח קובע את מידת השכיחות של טפילים. טפילים מסוימים יש דרישות המארח ספציפי מאוד להגביל את האזור שממנו הם נמצאים, אחרים הם generalists. אחד כזה הוא generalist Toxoplasma gondii ( T. gondii) . טפיל זה נמצא ברחבי העולם כפי שהוא יכול להדביק את כל היונקים ציפורים רבות. בני אדם הם גם רגישים ההערכה היא כי כ 1/3 של האוכלוסייה העולמית נדבק. למרבה המזל, תגובה חיסונית חזקה בדרך כלל שולטת על הצמיחה של הטפיל, אבל במצבים שבהם המערכת החיסונית נפגעת הטפיל יכול לגדול מסומנת ולגרום למחלות, לעתים קרובות אנצפלי. כמו כן, טפיל זה יכול לגרום למחלות מולדות אם נשים נגוע בעבר נגועים במהלך ההריון, כי הם חסרים זיכרון החיסון כדי להגביל במהירות את התפשטות הטפיל. בנוסף, יש נטל toxoplasmosis העין שיכול לגרום לאובדן ראייה 1 . עבור אלה reasoNs גונדי הפך למוקד המחקר, ובגלל שיטות מולקולריות רבות שפותחו עבור המחקר שלה, מודל טפילים Apicomplexan. שתי שיטות אשר יידונו כאן הם מיפוי כמותי Locus (QTL) מיפוי מקובצים באופן קבוע Interspaced קצר Palindromic חוזר (CRISPR) / Cas9 גן עריכה. מיפוי QTL ועריכת CRISPR / Cas9 הם, בהתאמה, גישות גנטיות קדמיות ופוכות ששימשו במחקרים קודמים לזיהוי ו / או אפיון גנים של גונדאלי. הנה, שיטות אלה משולבים כדי לזהות ולאשר את הפונקציה של הגן sinefungin התנגדות (SNF r ), TgME49_290860, ו אורתולוגים שלה ( מעוטר כמו SNR1 ) 2 .
למרות T. gondii יכול להדביק מגוון רחב של המארחים ביניים, הוא חייב לעבור דבק בתאי אפיתל המעי של עצה כדי להשלים את מחזור החיים. חתולים הם המארחים הסופי של הטפיל שבו sשלבים יוצאי דופן מיוצרים ואת רקומבינציה גנטית באמצעות המיוזה מתרחשת. כדי לבצע מחקר QTL יש ליצור צלב גנטי, ובמקרה של Toxoplasma זה אומר לעבור שני זנים שונים טפיל שונים זה מזה תכונה פנוטיפית, כתמי ההורים, דרך חתול לייצר צאצאים רקומביננטי 3 . לפני שהוא מוזן לחתולים, זנים ההורים נעשים עמיד בפני תרופות נפרדות כדי לאפשר זיהוי יעיל יותר של רקומביננטים על ידי בחירת סמים כפולה של הצאצאים 4 . שלוש תרופות שימשו ב T. gondii למטרה זו; Fluorodeoxyribose (FUDR) אשר עבורו uracil phosphoribosyl transferase ( UPRT ) הוא הגן ההתנגדות 5 , adenosine arabinoside (ARA) אשר עבורו אדנוזין קינאז ( AK ) הוא הגן ההתנגדות 6 , ו- sinefungin (SNF) אשר גן ההתנגדות לא היה ידוע לו 7 . כמה צלבים גנטיים היושנוצר עבור T. Gondii , אבל רק את הצאצאים של 24 ME49-FUDR R X VAND-SNF R צלב היו genotyped באמצעות רצף הגנום כולו (WGS) 8 . זה פתח את האפשרות של מיפוי וזיהוי הגן התנגדות SNF באמצעות הצלב הזה כמו ההורה VAND נעשה עמיד sinefungin על ידי mutagenesis כימי של זן רגיש VAND (VAND-SNF) זן, ואת הגנום התייחסות VAND היה רצף באמצעות VAND- זן של SNF ובכך מאפשר זיהוי של כל polyorphisms בין הצאצאים WGS לבין גנום התייחסות VAND-SNF s , כולל מוטציה הורשת VAND-SNF RV הוריות כי נתנו כמה הצאצאים sinefungin הצאצאים.
על מנת לזהות את סיבתית יחיד נוקליאוטידים פולימורפיזם (SNP) של צאצאים צאצא SNF, כמה משאבי קוד פתוח מבוססי חישוב ניתן להשתמש כדי לנתח את הנתונים. כדי ליצור את המפה הגנטית עבור ME49-FUDR R X VAND-SNF R לחצות את חבילת התוכנה REDHORSE 9 פותחה המשתמשת WGS יישור של ההורים הצאצאים כדי לזהות במדויק את עמדות הגנום של crossovers גנטי. מידע זה מיפוי אז יכול להיות משולב עם הנתונים פנוטיפי (SNF R בתא) לעצב מערך נתונים תואם את החבילה 'qtl' 10 ב R תוכנה תכנות סטטיסטי שבו סריקה QTL ניתן להפעיל לחשוף לוקוסים משמעותיים עם פנוטיפ. כדי לזהות את SNP סיבתי הממוקם בתוך מוקד QTL, WGS קורא של הצאצאים יכול להיות מיושר בנפרד לגנום SINEfungin רגיש VAND באמצעות תוכנית יישור Bowtie 2 שממנו 11 SNPs ניתן לקרוא באמצעות התוכנית varScan mpileup2snp המתקשר 12 . באמצעות SNP אלה, מוקד QTL יכול להיות סרוק עבור פולימורפיזם כי נמצאים RF SNF אבל לאב צאצא של SNF. עם SNP סיבתי המזוהה באזור קידוד של הגן, שינוי גנטי של הגן המועמד SNF R יכול להתבצע במתח של SNF כדי לאמת את התרופה עמידות לתפקוד.
מערכת הגנום CRISPR / Cas9 הוקמה לאחרונה ב- Toxoplasma 13 , שהוסיפה כלים חשובים לחקר הביולוגיה המורכבת של הטפיל הזה, במיוחד עבור מחקרים גנטיים בזנים שאינם מותאמים למעבדה. בשל הפעילות הלא-הומולוגית הפעילה (NHEJ) הפעילה ביותר בתאי טוקסופלסמה ( WT Toxoplasma) , שינוי גנום ממוקד קשה להשגה, שכן הדנ"א המשולב אקסוגני משולב באופן אקראי לגנום בתדירות גבוהה מאוד 14 . כדי להגדיל את שיעור ההצלחה של שינוי ספציפי לוקוס, גישות שונות הועלו כדי להגביר את היעילות של רקומבינציה הומולוגיים ו / או ירידהפעילות NHEJ 15 , 16 . אחת הגישות הללו היא מערכת CRISPR / Cas9. בהשוואה לשיטות אחרות, מערכת CRISPR / Cas9 יעילה בהכנסת שינויים ספציפיים לאתר וקל לתכנן 13 , 17 , 18 . בנוסף, ניתן להשתמש בו בכל זן Toxoplasma ללא שינוי נוסף לטפיל 13 , 19 .
מערכת ה- CRISPR / Cas9 נובעת ממערכת החיסון החיסונית של סטרפטוקוקוס pyogenes , אשר משתמשת בו כדי להגן על הפלישה של אלמנטים גנטיים ניידים כגון פאגים 20 , 21 , 22 . מערכת זו מנצל את RNA מודרך DNA אנלוגים אנזים CAS9 להציג פעמיים DNA גדיל לשבור (DSB) לתוך היעד, אשר לאחר מכן repaIred או על ידי NHEJ נוטה לשגיאה כדי להשבית גנים היעד באמצעות מוטציות indel קצר, או על ידי הומולוגיה מכוונת רקומבינציה לשנות את מיקום היעד בדיוק כפי שתוכנן 23 , 24 . ספציפיות היעד נקבע על ידי מולקולה קטנה RNA בשם RNA מדריך יחיד (gRNA), אשר מכיל רצף 20 מעוצבים באופן אינדיבידואלי, כי יש 100% הומולוגיה ל- DNA היעד 22 . המולקולה gRNA מכיל גם חתימות המוכרות על ידי CAS9 המכוונים את nuclease לאתר היעד, הכולל Protospacer מיוחד מוטיב הצמוד (PAM, רצף הוא 'NGG') 25 , 26 . לכן, מולקולת gRNA ואת רצף PAM לעבוד יחד כדי לקבוע את האתר Casavage Cas9 בגנום. אפשר בקלות לשנות את רצף gRNA למקד אתרים שונים עבור מחשוף.
כאשר מערכת CRISPR / Cas9 פותחה לראשונה ב- ToxopLasma, פלסמיד אחד להביע את nuclease Cas9 ואת המולקולה gRNA שימש להציג DSB באתר מיקוד 13 , 17 . זה הוכח כי מערכת CRISPR / Cas9 מגדיל באופן דרסטי את היעילות של שינוי הגנום באתר ספציפי, לא רק על ידי רקומבינציה הומולוגיים, אלא גם שילוב לא הומולוגיים של דנ"א אקסוגני 13 . זה עושה את זה זנים wildtype המכילים פעילות NHEJ. לכן, מערכת זו יכולה לשמש למעשה כל זן Toxoplasma עבור עריכת הגנום יעיל. בניסוי טיפוסי, היעד ספציפי CRISPR פלסמיד ואת קטע ה- DNA המשמש לשנות את היעד הם שיתוף transfected לתוך טפילים. אם קטע ה- DNA המשמש לשנות את היעד מכיל רצפים הומולוגיים אל היעד היעד, רקומבינציה הומולוגיים ניתן להשתמש כדי לתקן את ה- DSB הציג על ידי CRISPR / Cas9 כדי לאפשר שינוי מדויק של היעד. מצד שני, אם intRoduced קטע DNA אינו מכיל רצף הומולוגיים, זה עדיין יכול להיות משולב באתר CRISPR / Cas9 מיקוד. זה האחרון משמש לעתים קרובות כדי לשבש גנים על ידי החדרת סמנים לבחירה או כדי להשלים מוטציות ב loci המאפשרים בחירה שלילית 13 . כאן לוקוס SNR1 משמש כדוגמה כדי להראות כיצד CRISPR / Cas9 יכול לשמש הפרעה גנטית ואת הדור של טפילים מהונדס.
פרוטוקול
1. להעריך SNF r ב צאצא של ME49-FUDR r x VAND-SNF R צלב
הערה: T. gondii הוא טפיל תאיים מחייב את השלב tachyzoite בקלות גדל בתרבית רקמות.
- כדי לגדל את הטפיל gondii T. , לשמור אותם confroent האדם עורלה פיברובלסטים (HFF) תרבות monolayer seeded כדי T25 צלוחיות עם Dulbecco השתנה של הנשר בינוני (DMEM) התקשורת בתוספת 10% עוברי שור בסרום (FBS) (מדיה D10) ב 37 ° C ו 5% CO 2 .
הערה: ראה פרוטוקול 1.1 הערה בקובץ משלים 1 . - כדי לבדוק שיבוטים צאצא בודדים להתנגדות sinefungin, לגדל כל שיבוט צפיפות טפיל גבוהה בבקבוק תרבות T25 HFF במשך 2-3 ד, עד שרוב הטפילים מתחילים lyse תאים המארח.
- לגרד את monolayer עם מגרד תא ולהעביר את הפתרון טפיל דרך מזרק 10 מ"ל / 22 G מחט קהה 2-3x לאO lyse תאים המארח משחרר טפילים. הפתרון ניתן למשוך בחזרה לתוך המזרק עבור מעברים מחטים מרובים.
- סינון הפתרון טפיל לתוך צינור חרוטי חדש דרך קרום עם גודל הנקבוביות של 3 מיקרומטר כדי להסיר תאים HFF ופסולת הסלולר.
- לספור את הטפילים על hemocytometer ולקבוע את מספר הטפילים לכל מ"ל.
- באמצעות pipettor, לעבור 2.5 x 10 5 טפילים חדש T25 בקבוק HFF תרבות המכיל מדיה D10 עם ריכוז 0.3 מיקרומטר עבודה של התרופה sinefungin.
- לגדל את הטפילים ב 37 ° C ו 5% CO 2 עבור 7-10 ד.
- ציון הצאצאים של פנוטיפ הצמיחה בתרופה sinefungin. שימו לב monolayer תחת מיקרוסקופ בניגוד שלב הפוכה ואת הציון 0 ללא צמיחה (sinefungin רגיש), ציון 1 עבור צמיחה תמוגה של monolayer (עמיד sinefungin).
הערה: ראה פרוטוקול 1.8 הערה בקובץ משלים 1 .
2. RUn QTL סריקה של הפנוטיפ r SNF ב R / qtl
הערה: ראה פרוטוקול 2 הערה בקובץ משלים 1 .
- התקן את תוכנת שפת התכנות R במחשב מקומי. ראה 27 .
- הפעל R והתקן את החבילה 'qtl'. או לעשות זאת מאופציית הממשק R GUI 'חבילות -> התקן את החבילה (s)', או הפעל את הפקודה הבאה משורת הפקודה R (הסימן הראשון בכל דוגמה מציין את תחילת הפקודה, לא להיות מוּעֲתָק):
> Install.packages ("qtl")
הערה: לאחר התקנת החבילה R ו- qtl, קיימות שתי דרכים להפעלת R / qtl, משורת הפקודה R או באמצעות ממשק משתמש גרפי (GUI) הנקרא J / qtl 28 : ראה 29 להורדת J / Qtl. פרוטוקול זה יספק את R / qtl שורת הפקודה תחביר עם התייחסות מזדמנים לפונקציה המקבילה J / qtl. - טען את החבילה 'qtl':
> הספרייה (qtl)
הערה: ראה פרוטוקול 2.3 הערה ב קובץ משלים 1 עבור פורמט הנתונים והורדות. - טען את קובץ הנתונים לתוך R / qtl.
- לפורמט "csv" (ראה: קובץ נתונים 1):
> Cnv =, "= = csv", = = "PATH / Rqtl-SNFR.csv", genotypes = c ("0", "1"), na.strings = c ("-") , ConvertXdata = FALSE) - או לפורמט "גארי" (ראה: קובץ נתונים 2):
> SNFR <- read.cross (פורמט = "gary", dir = "$ PATH", chridfile = "chrid.txt", mnamesfile = "mname.txt", mapfile = "markerpos.txt", genfile = "גנוטיפ. Txt ", phefile =" phenos.txt ", pnamesfile =" phenonames.txt ", convertXdata = FALSE)
כאשר $ PATH הוא נתיב המדריך לקובץ (ים) המכיל את מערך הנתונים qtl. לדוגמה: / משתמשים / HotDiggityDog / QTLfiles
הערה: ניתן לטעון גם את הקבציםEd לתוך j / qtl עם הפקודות הקודמות באמצעות האפשרות 'הוספת הערה או פקודה', או לטעון את הנתונים עם GUI 'קובץ -> טען נתונים צולבים' אפשרות.
- לפורמט "csv" (ראה: קובץ נתונים 1):
- חישוב הסתברויות למפה:
> SNFR <- - הפעל סריקה אחת באמצעות הפצה בינארית של הפנוטיפ ההתנגדות sinefungin בכל הכרומוזומים:
>> SNFR.scan (cross = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa", "VIIB" "," VIII "," IX "," X "," XI "," XII "), pheno.col = c (1), model =" binary ", method =" em ")
הערה: אם אתה מפעיל את הפנוטיפ VIR, השתמש באפשרות ההפצה 'model =' Normal '. - הפעל 1000 תמורות כדי לחשב את סף החשיבות ולאחר מכן attrIbute את תמורות כדי המשתנה SNFR.scan:
> סריקה (צלב = SNFR, chr = c ("Ia", "Ib", "II", "III", "IV", "V", "VI", "VIIa" ("VII", "IX", "X", "XI", "XII"), pheno.col = c (1), model = "בינארי", method = "em", n.perm = 1000, perm.Xsp = FALSE, verbose = FALSE)
> ATR (SNFR.scan, "pheno.col") <- c (1)
הערה: ניתן להפעיל את הצעדים 2.5 עד 2.7 ב - J / qtl באמצעות האפשרות 'ניתוח -> סריקה ראשית -> הפעלת One QTL Genome Scan'. - החלק את תוצאות הסריקה:
> העלילה (SNFR.scan, פער = 0, bandcol = "אפור")
הערה: העלילה המיוצרת ב- J / qtl היא אינטראקטיבית.- מגרש את תוצאות הסריקה עבור כרומוזום התשיעי בלבד, הכרומוזום עם הפסגה הגבוהה ביותר:
> מקטע (SNFR.scan, chr = c ("IX"), פער = 0, bandcol = "אפור", show.marker.names = TRUE)
- מגרש את תוצאות הסריקה עבור כרומוזום התשיעי בלבד, הכרומוזום עם הפסגה הגבוהה ביותר:
- הצג את כל מיקומי הסמנים וציוני ה- LOD מתוך הסריקה היחידה:
> SNFR.scan - הצג את תוצאות הסף של בדיקת התמורה:
> סיכום (SNFR.scan.permutations) - הצג רק סמנים אלה גדולים מערכי הסף אלפא .05 (שנלקחו מהפלט הקודם):
> SNFR.scan [SNFR.scan $ lod> 2.68,] - הצג את הסמנים עם הציון הגבוה ביותר LOD על כל כרומוזום:
> סיכום (SNFR.scan) - הצג את הסמנים בעלי הערך המרבי של LOD (נלקח מהפלט הקודם):
> SNFR.scan [SNFR.scan $ lod> = 6.57,]
הערה: ראה פרוטוקול 2.13 הערה בקובץ משלים 1 .
3. לזהות את מוטציה SNF R סיבתית באמצעות WGS קורא מן הצאצאים
הערה: ראה פרוטוקול 3 הערה בקובץ משלים 1 .
- ליישר WGS קורא של צאצאים בודדים כדי sinefungin רגיש VAND(VAND-SNF) גנום ההורים.
הערה: הורד את גנום התייחסות VAND (SNF s ) מ NCBI הרכבה AEYJ00000000.2 ו WGS קורא (קבצי .Sra) עבור הצאצאים 24 מ NCBI SRA PRJNA258152. כמו כן, להוריד את התוכניות הבאות: Bowtie2 11 , NCBI SRA Toolkit, Samtools 30 , VarScan 12 , ו Mummmer 31 .- יצירת אינדקס תואם Botie 2 מקובץ VAND התייחסות גנום VAND באמצעות התוכנית bowtie2-build, הנה שם המדד "VAND":
> Bowtie2-build GCA_000224845.2_TGVAND_v2_genomic.fna VAND - המר את SRA מעוצב WGS קבצים לקריאה לקבצי FASTQ באמצעות fastq-dump עם אפשרות --split קבצים קבצים משויך (קובץ SRR1555372.sra עבור הצאצאים P1_14VB ישמש כדוגמה):
> Fastq-dump --split-files SRR1555372.sra
הערה: הפעל את כל הפקודות הבאות בפרוטוקול 3.1 עבור כל 24צֶאֱצָאִים. - יישור WGS קורא את הגנום התייחסות באמצעות bowtie2 עם פלט לקובץ SAM (.sam) ואת האפשרות - to-end:
> Bowtie2 -x VAND -1 SRR155372_1.fastq -2 SRR1555372_2.fastq -S SRR155372.sam - end-to-end - המר את קובץ ה- .sam לקובץ BAM (.bam):
> תצוגת samtools-sS SRR155372.sam> SRR155372.bam - מיין את קובץ .bam:
מיון SRR155372.bam SRR155372.sort - אינדקס קובץ ה- bam.
> Samtools index SRR155372.sort.bam
- יצירת אינדקס תואם Botie 2 מקובץ VAND התייחסות גנום VAND באמצעות התוכנית bowtie2-build, הנה שם המדד "VAND":
- התקשר SNP עבור הצאצאים באמצעות VarScan
הערה: ראה פרוטוקול 3.2 הערה בקובץ משלים 1 .- להמיר את כל קבצי BAM באינדקס (. Sort.bam) לתוך קובץ אחד pileup מעוצב באמצעות samtools mpileup עם קובץ הפניה הגנום VAND, כל הצאצאים. קבצים sort.bam, ואת הפלט לקובץ בשם AllProgeny-mpileup.txt:
> Samtools mpileup -f GCA_000224845.2_TGVAND_v2_genomic.fna SRR1555599.Sort.bam SRR1555372.sort.bam SRR1555660.sort.bam SRR1555672.sort.bam SRR1556052.sort.bam SRR1556122.sort.bam SRR1556192.sort.bam SRR1556194.sort.bam SRR1556195.sort.bam SRR1556199.sort.bam SRR1556200. תרגם. SRR1556203.sort.bam SRR1556274.sort.bam SRR1556276.sort.bam SRR1556278.sort.bam SRR1556395.sort.bam SRR1556396.sort.bam SRR1556397.sort.bam SRR1556398.sort.bam SRR1556399. Sort.bam SRR1556400.sort.bam SRR1556401.sort.bam SRR1556402.sort.bam> AllProgeny-mpileup.txt - התקשר כל SNPs באמצעות תוכנית mpileup2snp VarScan באמצעות קובץ AllProgeny-mpileup.txt, קריאת מינימום קריאה של 5, תדירות משתנה מינימלי על פני קריאות של 0.8, ערך p של 0.01, ואת הפלט אל שמות הקבצים AllProgeny-SNPs. טקסט:
> Java -jar VarScan.jar mpileup2snp AllProgeny-mpileup.txt - Min-cover 5 --min-var-freq .8 - p-value .01> AllProgeny-SNPs.txt
הערה: הקובץ AllProgeny-SNPs.txt הוא קובץ טקסט מופרד באמצעות לשונית שישמש בפרוטוקול 3.4 לאיתורה- SNP הסיבתי.
- להמיר את כל קבצי BAM באינדקס (. Sort.bam) לתוך קובץ אחד pileup מעוצב באמצעות samtools mpileup עם קובץ הפניה הגנום VAND, כל הצאצאים. קבצים sort.bam, ואת הפלט לקובץ בשם AllProgeny-mpileup.txt:
- מצא VAND קואורדינטות גנום התואמות את הקואורדינטות של מוקד QTL ME49 מבוסס
הערה: ראה פרוטוקול 3.3 הערה בקובץ משלים 1 .- השתמש בתוכנית Mummer nucmer כדי ליישר את הגנום ME49 (זמין להורדה מ- ToxoDB.org 32 ) ואת קובץ הגנום של VAND (הפלט עובר לקובץ out.delta):
> Nucmer ToxoDB-28_TgondiiME49_Genome.fasta GCA_000224845.2_TGVAND_v2_genomic.fna - השתמש בתוכנית MUMmer Show-Coords כדי להשיג את הקואורדינטות של שתי היציאות של הגנום, פלט לקובץ בשם ME49vsVAND-coords.txt:
> Show-coords out.delta> ME49vsVAND-coords.txt
הערה: ניתן להשתמש בקובץ ME49vsVAND-coords.txt כדי למצוא את חיבורי VAND ואת המיקומים המתאימים למיקום QTL; סמנים MV359 ל MV366 הממוקם על ME49 כרומוזום IX בין 3,187,537 ל 4,202,258 bp. ישנם שני contands VAND כי טווח correspעל מוקד QTL; KN044604.1: 657,441-1 bp ו- KN042501.1: 430,910-41,870 bp (שני הזרמים מתאימים לאחור לכרומוזום ME49).
- השתמש בתוכנית Mummer nucmer כדי ליישר את הגנום ME49 (זמין להורדה מ- ToxoDB.org 32 ) ואת קובץ הגנום של VAND (הפלט עובר לקובץ out.delta):
- להעריך צאצאים SNPs הממוקם בתוך מוקד QTL עבור SNPs בירושה רק את הצאצאים r SNF
הערה: ראה פרוטוקול 3.4 הערה בקובץ משלים 1 .- עיין בנתוני קובץ 3 כדי לזהות את המוטציה הסיבתית הממוקמת באזור לוקליזציה של QTL. סרוק את הנתונים עבור דפוס שבו הצאצאים r SNF יש SNP ו SNF s (לא אפשרי כי SNPs צאצאים צאצאים הושגו על ידי השוואה לגנום VAND-SNF התייחסות). זה אמור רק לגרום למצב אחד עם דפוס זה, מיקום 348130 על VAND contig KN042501.1.
- ראה שורה 6604 בקובץ נתונים 3 ( איור 3 ).
הערה: ראה פרוטוקול 3.4.2 הערה בקובץ משלים 1 .
4. אימות להיטים מזוהים על ידי CRISPR / Cas9-מתווך גנטי.
הערה: כדי לאשר את SNP סיבתי המזוהים על ידי מיפוי QTL וניתוח WGS SNP, השינויים הגנטיים המקביל צריך להיעשות ברקע של WT SNF ואת הפנוטיפ שהתקבל נבדק. במקרה של התנגדות sinefungin, המוטציה אחראית תוצאות inactivation של הגן SNR1 על ידי סיום מוקדם 2 . לכן, הפרעה של SNR1 יכול לשמש לאישור. הנה פרוטוקול מפורט מסופק על השימוש CRISPR / Cas9 המושרה מוטציות Indel כדי לשבש SNR1 , כדי להוכיח את מעורבותה התנגדות sinefungin ( איור 4 ).
- SNR1 ספציפי CRISPR בנייה פלסמיד
הערה: ראה פרוטוקול 4.1 הערה בקובץ משלים 1 לקבלת פלסמידים ומפות.- השג את הרצף הגנומי של הגן המטרה ( SNR1 , TGME49_290860) מ ToxoDB 32 .
- השתמש בכלים מקוונים כגון E-CRISP 33 כדי לתכנן gRNAs ספציפיים היעד. אל תכלול את רצף ה- PAM (NGG) ב- gRNA.
הערה: ראה פרוטוקול 4.1.2 הערה בקובץ משלים 1 . - לסנתז primers לבנות את המטרה ספציפית CRISPR פלסמיד.
- על פי העיצוב משלב 4.1.2, לסנתז שני primers כדי לשנות את UPRT מיקוד gRNA ב פלסמיד CRISPR המקורי לרצף gRNA הנבחר על ידי mutagenesis מכוונת האתר.
הערה: רצפים של שני primers אלה הם כדלקמן: gRNA-Fw: NNNNNNNNNNNNNNNGTTTTAGAGTAGAGAAATAGC (N20 הוא רצף היעד gRNA ספציפי) ו- gRNA-Rv: AACTTGACATCCCCATTAC 2 .
- על פי העיצוב משלב 4.1.2, לסנתז שני primers כדי לשנות את UPRT מיקוד gRNA ב פלסמיד CRISPR המקורי לרצף gRNA הנבחר על ידי mutagenesis מכוונת האתר.
- בצע את האתר מכוונת mutagenesis התגובות.
- באמצעות UPRT מיקוד CRISPR פלסמיד (pSAG1 :: CAS9-U6 :: sgUPRT) כתבנית ושני primers המפורטים לעיל, לבצע האתר מופנית התגובות mutagenesisבהתאם להוראות היצרן.
הערה: השתמש בתנאים הבאים אופניים עבור PCR: 98 מעלות צלזיוס למשך 1 דקות, ואחריו 25 מחזורים של 98 מעלות צלזיוס במשך 10 שניות, 55 מעלות צלזיוס למשך 30 שניות ו 72 מעלות צלזיוס למשך 5 דקות, ואחריו הארכה הסופי של 2 דקות ב 72 ° C.
- באמצעות UPRT מיקוד CRISPR פלסמיד (pSAG1 :: CAS9-U6 :: sgUPRT) כתבנית ושני primers המפורטים לעיל, לבצע האתר מופנית התגובות mutagenesisבהתאם להוראות היצרן.
- לשנות את המוצרים mutagenesis המכיל את הפלסמידים ספציפיים CRISPR ספציפיים כדי E. תאים coli המוסמכת על ידי שינוי כימי על פי פרוטוקול הספק (ראה טבלאות של חומרים ). לגדל את transformants על lysogeny מרק (LB) צלחות המכיל ampicillin (100 מיקרוגרם / מ"ל) ב 37 ° C. לאחר מכן, לבחור שיבוטים 2-4 בנפרד לגדל אותם בינוני 5 מ"ל LB בתוספת 100 מיקרוגרם / mL ampicillin עבור 12-16 שעות.
- חלץ פלסמידים מן התרבויות באמצעות ערכת בידוד דנ"א ולנתח אותם על ידי ג 'ל דנ"א אלקטרופורזה כדי לבדוק את גודל הפלסמידים (גודל פלסמיד צפוי הוא 9674 BP, השתמש CRISPR המקורי פלסמיד כOntrol). השתמש M13-Rev תחל (5'-CAGGAAACAGCTATGACC) כדי רצף פלסמידים כדי לאשר את הרצף היעד gRNA ספציפי.
- לאחר שיבוטים חיוביים מזוהים, לאחסן גם DNA פלסמיד ב -20 מעלות צלזיוס ו תרבות חיידקים המקביל ב -80 מעלות צלזיוס לשימוש עתידי.
הערה: CRISPR פלסמיד לשמש transfection צריך להיות מומס במים deionized ואת הריכוז נקבע על ידי spectrophotometry או שיטה חלופית.
- לאחר שיבוטים חיוביים מזוהים, לאחסן גם DNA פלסמיד ב -20 מעלות צלזיוס ו תרבות חיידקים המקביל ב -80 מעלות צלזיוס לשימוש עתידי.
- חלץ פלסמידים מן התרבויות באמצעות ערכת בידוד דנ"א ולנתח אותם על ידי ג 'ל דנ"א אלקטרופורזה כדי לבדוק את גודל הפלסמידים (גודל פלסמיד צפוי הוא 9674 BP, השתמש CRISPR המקורי פלסמיד כOntrol). השתמש M13-Rev תחל (5'-CAGGAAACAGCTATGACC) כדי רצף פלסמידים כדי לאשר את הרצף היעד gRNA ספציפי.
- טפיל.
הערה: שיטות כלליות עבור גונדאי T culturing בתאי HFF במדיום D10 תוארו בעבר 34 .- 2-3 ימים לפני transfection, להוסיף טפילים מספיק בקבוק T25 המכיל monolayer תא HFF confluent (0.5-1 x 10 6 עבור סוג 1 זנים, 1-2 x 10 6 עבור זנים אחרים) כדי להשיג 70 - 80% HFF תא תמוגה בתוך 2-3 ד.
- אקסמיNe התרבות תחת מיקרוסקופ בניגוד שלב הפוך, כאשר monolayer HFF הוא 70-80% lysed על ידי הטפילים. בעדינות להסיר את המדיום עם פיפטה לשטוף את התאים את משטח הבקבוק עם 5 חיץ cytomix מ"ל (120 מ"מ KCl, 0.15 מ"מ CaCl 2 , 10 מ"מ K 2 HPO 4 / KH 2 PO 4 pH = 7.6, 25 מ"מ HEPES, 2 MM EDTA, 5 מ"מ MgCl 2 , pH = 7.6). לאחר מכן, להעביר את הפתרון טפיל לצינור חרוטי 15 מ"ל.
הערה: ראה פרוטוקול 4.2.2 הערה בקובץ משלים 1 . - לעבור את הפתרון טפיל דרך מזרק 10 מ"ל / 22 G מחט קהה 2-3x.
- סינון הפתרון טפיל לתוך צינור חרוטי חדש דרך קרום עם גודל הנקבוביות של 3 מיקרומטר כדי להסיר תאים HFF ופסולת הסלולר.
- גלולה טפילים מסוננים על ידי צנטריפוגה ב XG 400 במשך 10 דקות.
- יוצקים את supernatant ו resuspend טפילים pellet עם חיץ 10 מ"ל cytomix, לקחת aliquot 10 μL כדי detErmine ריכוז הטפיל עם hemocytometer ו גלולה את השאר על ידי צנטריפוגה ב 400 × גרם במשך 10 דקות.
- הסר supernatant ו resuspend גלולה במאגר cytomix להשיג צפיפות של 4 x 10 7 פרזיטים / מ"ל.
- ב 4 מ"מ coveette הפער, לערבב 250-300 פתרון טפיל μL (1-1.3 x 10 7 טפילים) עם 7.5 מיקרוגרם CRISPR פלסמיד, 6 μP ATP (100 מ"מ), ו 6 גלוטתיון μL (GSH) (250 מ"מ).
- Electroporate הטפילים 35 . כלול electroporation נפרד כבקרה שלילית שבה מטרות CRISPR פלסמיד במקומות אחרים, כגון UPRT מיקוד CRIPSR פלסמיד.
הערה: הגדרות electroporation תלויות בהתקן. עבור electroporator המפורטים החומרים להשתמש cuvettes 4 מ"מ פער. הפרוטוקול הבא מומלץ: 1,700 V, 176 μs אורך הדופק, 2 פעימות עם מרווח 100 ms.
- לקבוע את התדירות של resine sinefunginNce לאחר מיקוד CRISPR.
- זרעים HFF תאים coverslips להציב 24 גם צלחות 3-4 ד לפני electroporation כך שהם confluent על ידי הזמן לבצע transfection ב 4.2.
- Trypsinize את התאים HFF מבקבוק אחד T25 מלוכלך ולאחר מכן להוסיף 12 מ"ל D10 בינוני ומערבבים היטב.
- הוסף coverslip היטב של צלחת 24-היטב aliquot 500 פתרון μL HFF התא לכל אחד טוב. דגירה את הצלחת על 37 מעלות צלזיוס במשך 3 4 ד לתת לתאים לגדול עד confluent.
הערה: תאים מבקבוק T25 אחד מספיק כדי זרע אחד 24 צלחת היטב. - הוסף 50 μL של פתרון טפיל electroporated משלב 4.2.9 לתוך אחד טוב של צלחת 24 גם המכיל coverslip seeded עם תאים HFF ומחוברות. מעבירים את שאר הפתרון טפיל electroporated לתוך בקבוק T25 seeded עם תאים HFF ומחוברות.
- להעריך את היעילות של transfection.
- לגדל את התאים בצלחת 24 גם עבור 24 שעותולאחר מכן לתקן את התאים (תאים המארח טפילים) עם 500 פורמלדהיד μl 500% כדי לבדוק את הביטוי של Cas9-GFP ידי assay immunofluorescent (IFA).
- בדוק את התאים עם נוגדן אנטי GFP ו נוגדן ספציפי Toxoplasma (כגון אנטי TgALD) כדי התווית טפילים סה"כ. ראה את גיליון המוצר הנוגדן לדילול המומלץ (בדרך כלל, 1: 1,000 מספיק עבור IFAs). אם הנוגדנים אינם משוחדים, השתמש בשני נוגדנים משניים שונים המצמידים עם צבעי ניאון לתווית הנוגדנים הראשוניים.
- שימו לב לתאים שכותרתו על מיקרוסקופ פלואורסצנטי עם מסננים המתאימים לצבעים ניאון משני. השגת יעילות transfection ידי חלוקת מספר טפילים חיוביים GFP על ידי מספר טפילים סך.
הערה: שני נוגדנים המשמשים IFA צריך לבוא משני מינים שונים המארח, למשל באמצעות שילוב של העכבר נגד GFP וארנב נגד TgALD.
- לקבוע את fהדרישה של התנגדות sinefungin ב טפילים transfected.
- עבור transfected טפילים מתורבת T25 צלוחיות, לגדל אותם 2-3 d עד היציאה הטבעית. ואז לאסוף את הטפילים, מחט קהה lyse תאים המארח לשחרר טפילים תאיים, ולטהר אותם על ידי סינון דרך ממברנות עם גודל הנקבוביות של 3 מיקרומטר. לספור את הטפילים עם hemocytometer לאמוד את הצפיפות.
- הוספת טפילים מטוהרים לתוך 6 צלחות היטב seeded עם תאים HFF ומחוברות: בשורה הראשונה (3 בארות), להוסיף 200 טפילים / גם לגדל אותם בינוני D10 רגיל (2 מ"ל / טוב); עבור השורה השנייה, להוסיף 5000 טפילים / גם לגדל אותם בינוני D10 המכיל sinefungin 0.3 מיקרומטר.
- שים את הצלחות של 5% CO 2 חממה לגדל את הטפילים על 37 ° C 8-10 ד ללא הפרעה לאפשר לוחות ליצור. תקן את דגימות עם אתנול 70% (2 מ"ל / טוב) ואת הכתם monolayer עם 0.1% קריסטל ויולט (2 מ"ל / טוב). לשטוף את הבארות עם מים כדי לדמייןהפאקים (אזורים ברורים) שנוצרו על ידי גידול הטפיל.
הערה: יש לעבד את השליטה השלילית באותו אופן, זה לצד זה.
- חישוב שיעור CRISPR המושרה התנגדות sinefungin.
- השג את המספר הממוצע (X) של פלאק מבארות המכילות לא סמים ולחשב את הכדאיות טפיל כמו X / 200. השג את המספר הממוצע (Y) של פלאקים מבארות המכילות sinefungin כדי לחשב את שיעור ההתנגדות sinefungin CRISPR המושרה כדלקמן:
שיעור ההתנגדות המושרה של CRISPR = 200 × Y / (5000 × X × יעילות transfection)
הערה: יעילות Transfection מתקבל 4.3.2.
- השג את המספר הממוצע (X) של פלאק מבארות המכילות לא סמים ולחשב את הכדאיות טפיל כמו X / 200. השג את המספר הממוצע (Y) של פלאקים מבארות המכילות sinefungin כדי לחשב את שיעור ההתנגדות sinefungin CRISPR המושרה כדלקמן:
- זרעים HFF תאים coverslips להציב 24 גם צלחות 3-4 ד לפני electroporation כך שהם confluent על ידי הזמן לבצע transfection ב 4.2.
- לבחון את מוטציות האינדל המושרה על ידי CRISPR / Cas9
- לגדל את הטפילים electroporated מסעיף 4.2.9 בבקבוק T25 זרע עם תאים HFF עבור 2 ד ב 37 מעלות צלזיוס. לאחר מכן, להחליף את המדיום עם בינוני 5 מ"ל D10 המכיל sinefungin 0.3 מיקרומטר (בינוני הבחירה).
- שמור על טפילים בינוני הבחירה לפחות 3 מעברים עד הבריכה עמיד הופך יציב (מסומן על ידי היעדר צמיחה טפיל בקבוצת הביקורת השלילית, אבל צמיחה טפיל חזק בקבוצת הניסוי).
- Subclone הבריכה עמיד sinefungin להשיג זנים משובטים.
- איסוף טפילים שנפרצו טריים, לטהר ידי 3 סינון קרום מיקרומטר subclone לתוך צלחות 96 גם צלעות עם תאים HFF ומחוברות ב 150 μL מדיום D10. לגדל את התרבויות subcloning באינקובטור CO 2 ב 37 מעלות צלזיוס במשך 7 - 10 ד מבלי להפריע את הצלחות.
הערה: ראה פרוטוקול 4.4.2.1 הערה בקובץ S.
- איסוף טפילים שנפרצו טריים, לטהר ידי 3 סינון קרום מיקרומטר subclone לתוך צלחות 96 גם צלעות עם תאים HFF ומחוברות ב 150 μL מדיום D10. לגדל את התרבויות subcloning באינקובטור CO 2 ב 37 מעלות צלזיוס במשך 7 - 10 ד מבלי להפריע את הצלחות.
- בדוק את צלחות 96-היטב תחת מיקרוסקופ בניגוד שלב שלב לחפש בארות המכילים רק רובד אחד. סמן בארות כאלה ולאחר מכן להעביר את התאים מבאר כל טוב 24 צלחות seeded עם תאים HFF באמצעות פיפטה.
- כאשר 80-90% של תאים HFF בבאר הם lysed, למסוק את הטפילים (כ 500 μL) ולהעביר 50 פתרון טפיל μL לבאר חדשה כדי לשמור על המתח. השתמש בשאר (≈ 450 μL) כדי לחלץ DNA גנומי עבור הגברה PCR.
- לבידוד דנ"א גנומי מ שיבוט r SNF, גלולה טפילים (כמויות קטנות של זיהום התא HFF נסבל) ב 1000 xg במשך 10 דקות. שטפו את הטפילים pelleted עם מלוחים שנאגרו מלוחים (PBS) פעם אחת גלולה אותם שוב. בידוד דנ"א גנומי מ pelleted תאים באמצעות ערכת מסחרית או על ידי רותחים. Resuspend טפילים 50-100 μL PBS.
הערה: בצע PCR כדי לקבל קטע של הגן SNR1 עבור רצף. השתמש פריימרים הבאים כדי להגביר את SNR1 לוקוס 2 : SNR1-Amp-Fw: 5 'CCGACCACAA CAATTTTC ו SNR1-Amp-Rv: 5'GACGTGATTCACTTTTTACACAGACAGAC. השתמש פולימרזות DNA נאמנות גבוהה. להגביר את מוקד WT למטרות שליטה.
- לבידוד דנ"א גנומי מ שיבוט r SNF, גלולה טפילים (כמויות קטנות של זיהום התא HFF נסבל) ב 1000 xg במשך 10 דקות. שטפו את הטפילים pelleted עם מלוחים שנאגרו מלוחים (PBS) פעם אחת גלולה אותם שוב. בידוד דנ"א גנומי מ pelleted תאים באמצעות ערכת מסחרית או על ידי רותחים. Resuspend טפילים 50-100 μL PBS.
- בצע tהוא PCR עם נפח תגובה 20 μL ולהפעיל אותו עם התוכנית הבאה: 98 מעלות צלזיוס במשך דקות 1, ואחריו 30 מחזורים של 98 מעלות צלזיוס במשך 10 שניות, 55 מעלות צלזיוס למשך 30 שניות ו 72 מעלות צלזיוס למשך 2.5 דקות, ואחריו הארכה הסופית עבור 2 דקות ב 72 מעלות צלזיוס.
הערה: רצף את מוצרי ה- PCR באמצעות הפריימרים הבאים: SNR1-Seq1: 5 'GAC ACA TGC TTT AGC GTG, SNR1-Seq2: 5' TCC TCT CCA TCA CGG GTG GG, SNR1-Sq3: 5 '' GCA AGA GCC GCG TGA CG , SNR1-Seq4: 5 'CTC TCC CGC GGT CGA G, SNR1-Seq5: 5' 'GCA CCG TCC GCA AGC, ו SNR1-Seq6: 5' CCG GAA GGT GAA TCG TTC TTC. - השווה את רצפי הגן SNR1 מ mutines עמיד sinefungin לזה של זן WT באמצעות כלי יישור רצף.
הערה: ראה פירוט נוסף של קובץ 2 פרוטוקול 5 לקבלת פרטים על ניצול של בחירה שלילית על לוקוס SNR1 עבור השלמה גנטית או בנייה זנים מהונדס.
- לגדל את הטפילים electroporated מסעיף 4.2.9 בבקבוק T25 זרע עם תאים HFF עבור 2 ד ב 37 מעלות צלזיוס. לאחר מכן, להחליף את המדיום עם בינוני 5 מ"ל D10 המכיל sinefungin 0.3 מיקרומטר (בינוני הבחירה).
תוצאות
מאמר זה מתאר בפירוט מספר שיטות שניתן להשתמש בהם ברצף כדי לזהות גן אחראי על עמידות התרופה ( איור 1 ). 24 הצאצאים של ה- ME49-FUDR r x VAND-SNF r r הצלבים הוערכו עבור ההתנגדות ל- sinefungin של התרופה כמתואר בפרוטוקול 1. באמצעות המפה הגנטית והפנוטיפ r SNF של הצאצאים, סריקה של QTL הופעלה ב- R / Qtl - פרוטוקול 2 ( איור 2 ). זה הביא לשיא משמעותי אחד על כרומוזום התשיעי פורש כ 1 Mbp. באזור זה נמצאת המוטציה הסיבתית.
כדי לזהות את המוטציה הסיבתית, WGS קורא מן הצאצאים היו מיושרים לגנום ההתייחסות של VAND-SNF באמצעות Bowtie2 - Protocol 3.1, SNPs נקראו באמצעות varScan mpileup2snp - פרוטוקול 3.2, ומיקום QTL בגנום VAND זוהה באמצעות Mummmer - פרוטוק3.3. צאצאי SNPs בתוך לוקוס QTL חולצו ונסרקו עבור דפוס שבו הצאצאים r SNF יש SNP ו SNF זה לא, וזה אפשרי כי SNPs צאצאים צאצאים הושגו על ידי השוואה גנום VAND-SNF התייחסות ( איור 3 ) . רק SNP אחד מתאים דפוס זה וכתוצאה מכך קודון להפסיק מוקדם ב משוער חומצת אמינו חומצה גן בשם SNR1 .
אישור כי SNR1 הוא הגן SN ההתנגדות R SNF בוצעה באמצעות מערכת CRISPR / Cas9. חדש CRISPR / Cas9 פלסמיד מהונדסים עבור T. עריכת gondii הגן נעשה המכיל gRNA מיקוד הגן SNR1 ליד מוטציה R SNF מזוהה הצאצאים - פרוטוקול 4 ( איור 4 א ). SNR1 המיקוד CRISPR / Cas9 פלסמיד היה electroporated לתוך זן של WT טפיל WT טפיל ומוטנטים עמידים הושגו כאשר כתUred ב 0.3 מיקרומטר sinefungin. לא טפילי r SNF התקבלו כאשר electroporated עם UPRT מיקוד CRISPR / Cas9 פלסמיד. כמה מוטציות CRFPR SNF r היו משובטים באזור סביב המטרה gRNA SNR1 היה רצף. כל מוטציה היה indel כי שיבשו את רצף קידוד של הגן SNR1 ( איור 4 ב ). שיטה זו יכולה לשמש גם כדי להוסיף מבנה מיקוד לתוך לוקוס SNR1 באמצעות NHEJ ( איור 5), או על ידי HR ( איור 6 ) - קובץ משלים 2 .
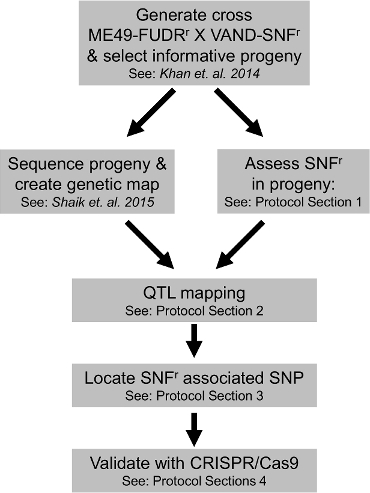
איור 1: זרימת עבודה סכמטית לניסויים המפורטים בפרוטוקולים. השלבים העיקריים בזיהוי ואישור הגן RF SNF באמצעות ME49-FUDR R X VAND-SNF R צלב מוצגים עם התייחסות הפרוטוקולים המתאימים המפורטים inבמאמרו. אנא לחץ כאן כדי להציג גרסה גדולה יותר של דמות זו.
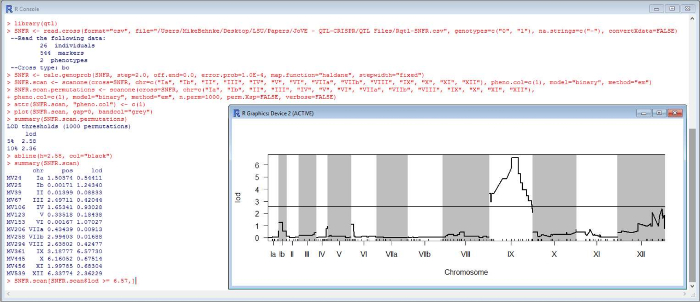
איור 2: R / qtl פקודות להפעלת QTL Scan על פנוטיפ rF SNF. הפקודות כפי שתוארו בפרוטוקול 2 הופעלו ב- R באמצעות חבילת qtl. פקודות נציג העלילה מוצגים. אנא לחץ כאן כדי להציג גרסה גדולה יותר של דמות זו.
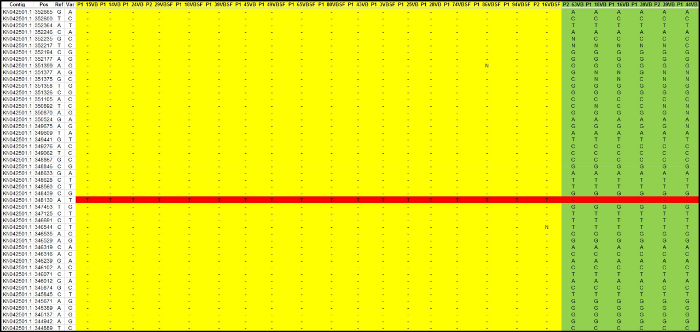
איור 3: מיקום SNP הסיבתי. צאצאי WGS קורא היו מיושרים את הגנום VAND-SNF התייחסות עם Bowtie 2, SNPs נקראו עם VarScan, ואת מתאימות מיקום VAND QTL מזוהה עם Mummmer. SNPs הממוקמים בתוך מוקד QTL יובאו לגיליון אלקטרוני ו- SNP סיבתי זוהה. הצאצאים של ה- SNF (צהוב), צאצאים של SNF (ירוק), SNF r SNP (אדום) (ראה קובץ נתונים 3 ). אנא לחץ כאן כדי להציג גרסה גדולה יותר של דמות זו.
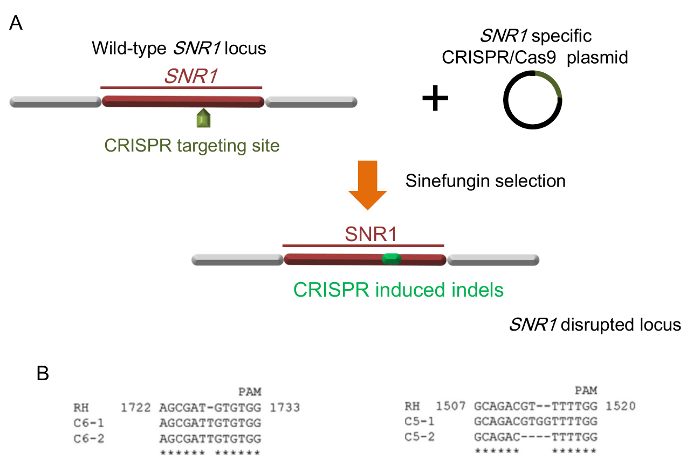
איור 4: אישור SNR1 כמו SNF r ג 'ין באמצעות CRISPR / Cas9. ( א ) CRISPR / Cas9 המושרה מוטציות Indel (ירוק) ב SNR1 לוקוס. ( B ) נציג Indels ב SNR1 נגרמת על ידי שני CRRPR ספציפיים שונים CRISPR פלסמידים (C5 ו C6 בהתאמה). RH הוא זן WT ו C5 ו C6 הם מוטציות SNF r . (B נלקח מתוך התייחסותS = "xref"> 2). אנא לחץ כאן כדי להציג גרסה גדולה יותר של דמות זו.
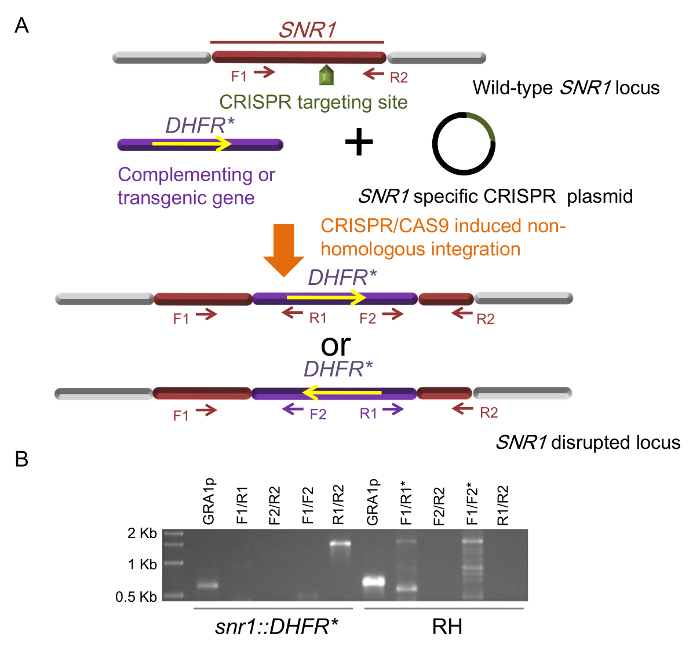
איור 5. Insertional Mutagenesis באמצעות CRISPR / Cas9. ( א ) הוספת גנים משלימים או מהונדסים לתוך לוקוס SNR1 על ידי CRISPR / Cas9 בתיווך אינטגרציה ספציפית לאתר. שתי האוריינטציות האפשריות של הגן המיני DHFR * שהוכנס והפריימרים המשמשים לזיהוי, F1 / 2 ו- R1 / 2 מייצגים את אתרי הפרימינג של oligos המשמשים ב- PCRs אבחון. ( B ) אבחון PCRs של אחד snr1 :: DHFR * לשכפל, RH משמש כפקד WT. PCR של GRA1p נכלל כביקורת בדיקת איכות הדנ"א הגנומי כתבניות. כוכביות מציינות נתיבים עם להקות לא ספציפיות (איור 5 ב נלקח מן להפנותCE 2 ). אנא לחץ כאן כדי להציג גרסה גדולה יותר של דמות זו.
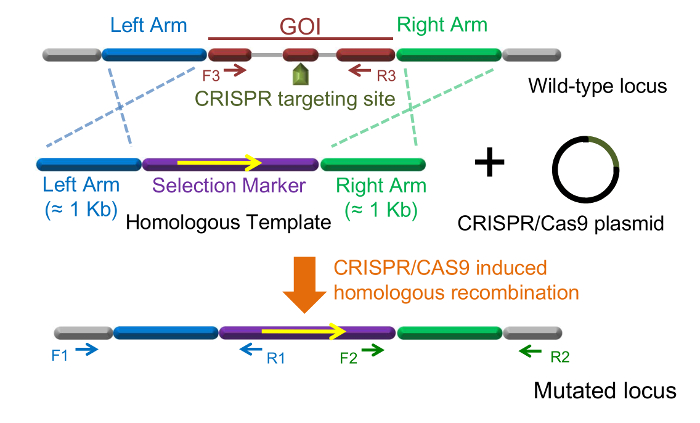
איור 6: נוקאוט גנים באמצעות CRISPR / Cas9. עיצוב קלאסי עבור CRISPR / Cas9 בתיווך תחליף גנטי הומולוגיים ב T. gondii . הכיוון של transgene שהוכנס קבוע במקרה זה. F1 / R1, F2 / R2 ו- F3 / R3 מייצגים את אתרי הפרימינג של oligos המשמשים PCRs אבחון. אנא לחץ כאן כדי להציג גרסה גדולה יותר של דמות זו.
קובץ נתונים 1: ME49-FUDR r X VAND-SNF r קובץ הצלב fאו להשתמש ב R / qtl, "CSV" פורמט. קובץ .csv אחד שניתן לטעון ל- R / qtl עם אפשרות הפורמט = "csv". לחץ כאן להורדת הקובץ.
קובץ נתונים 2: (chrid txt, גנוטיפ txt, markerpos.txt, mname.txt, phenonames.txt ו- phenos.txt). ME49-FUDR R X VAND-SNF R קבצים צולבים לשימוש R / qtl, "גארי" פורמט. שש. קבצי txt שניתן לטעון ב R / qtl עם אפשרות פורמט = "gary". לחץ כאן להורדת הקובץ.
קובץ נתונים 3. גיליון אלקטרוני עם Progeny SNPs על פני ה- SNF QTL Locus. מכיל גיליון עבודה אחד עם SNPs צאצאים, וגליון עבודה שני עם הנתונים פנוטיפי של ההורים הצאצאים של הצלב. לחץ כאן להורדת הקובץ.
קובץ משלים 1: פרטי פרוטוקול נוסף. לחץ כאן להורדת הקובץ.
קובץ משלים 2: פרוטוקול 5 - ניצול של בחירה שלילית ב SNR1 Locus עבור השלמה גנטית או בנייה זנים מהונדס . לחץ כאן להורדת הקובץ.
דיון
פרוטוקולים אלה מציגים מספר שיטות כי כאשר בשילוב לאפשר זיהוי של הגן עמידות התרופה T. gondii . שני בפרט היו אינטגרלי לפרויקט, השיטה מתובל יחסית של מיפוי QTL ואת השיטה שפותחה לאחרונה של CRISPR / Cas9 עריכת הגן. לנדר ובוטשטיין פירסמו את השפעתם על הנייר ב -1989 בהפגנת מיפוי QTL המקשר בין לוקוסים גנטיים לבין פנוטיפים 36 . לאחרונה, בשנת 2012, תיאר Dounda ו- Charpentier את מערכת העריכה של CRISPR / Cas9 ב- Streptococcus pyogenes 22, אשר הותאמה במהירות ככלי גנטי במודלים שונים, כולל T. gondii 13 , 17 . שתי השיטות היו שימושיות כאן, כאשר מיפוי QTL הגדיר את מוקד המכיל את המוטציה עמידות התרופה שזוהה בסופו של דבר באמצעות זיהוי SNP מבוסס WGS, ועריכת CRISPR / Cas9 סיפקה לי As לאשר SNR1 הוא הגן sinefungin התרופה סמים.
ה- ME49-FUDR r x VAND-SNF r 8 פותח במקור כדי לחקור פנוטיפ ארסיות 19 , אבל זנים ההורים גם במקרה יש הבדל פנוטיפי נוסף אשר הגן הסיבתי לא היה ידוע, התנגדות sinefungin בהורה VAND. זה מדגיש יתרון אחד של צלבים כי הם יכולים להיות repurposed כאשר הבדלים פנוטיפי נוספים אצל ההורים הם נצפו. זה היה המקרה של הצלב Toxoplasma אחר, סוג 2 x סוג 3, שבו כמה גנים המעורבים ארסיות נמצאו על ידי מיפוי מספר פנוטיפים 37 , 38 , 39 , 40 . עד כה, ארבעה צלבים שונים T גונדיי תוארו בשימוש למפות גנים האחראים על פנוטיפיםSs = "xref"> 8 , 37 , 41 , 42 , אשר לכולם יש פוטנציאל לעשות שימוש חוזר למפות פנוטיפים חדשים שעבורם הבסיס הגנטי אינו ידוע. לאורך השורות הללו, הגנום של 62 טוני גונדיי המייצג את המגוון הגנטי העולמי ידוע כבר רצף 43 . צלבים חדשים יכול להיות מבריכה זו עבור זנים שונים זה מזה פנוטיפים מעניינים. לאחר שהזכיר את היתרונות של מיפוי QTL, יש לומר כי יצירת צלב אינה התחייבות קטנה. ישנן שיטות אחרות שניתן להשתמש בהן לזיהוי גנים סיבתיים. אחת הטכניקות החזקות משתמשת mutagenesis כימיים כדי ליצור מוטציות שניתן לבדוק עבור פנוטיפים. כדי למצוא את הגן הסיבתי, מוטציות יכול להיות משלים עם ספריות קוסמייד 44 או שיטות resequencing הגנום ניתן להשתמש כדי למצוא את המוטציה הסיבתית 45 . לקבלת מומחדש על זה, ראה שני מאמרים של JoVE על ידי Coleman et al. ו Walwyn et al. המתאר גישות אלה 46 , 47 .
רבים מהצעדים המוליכים לזיהוי המוטציה הסיבתית של ה- SNF r (פרוטוקולים 2 ו -3) מסתמכים על שיטות חישוביות המתבצעות עם תוכנה הזמינה באופן חופשי לשימוש אקדמי. פקודות מפורטות עבור כל שלב מסופקות וכאשר לרוץ עם הקבצים הנכונים יאפשר למשתמש ליצור מחדש את הנתונים הדרושים כדי למצוא את סיבתית SNF R SNP. זכור שחלק מהתחביר בפקודות מתייחס לשמות קבצים או למבנה ספריות ($ PATH) שניתן לשנותם להעדפות המשתמש. למרות הפקודות שניתנו כאן בהחלט לא למצות את הדרכים ניתן לנתח צלב עם ניתוח QTL ו WGS מבוסס זיהוי SNP, הם מקיפים מספיק כדי לחזור על הניסוי המתואר במאמר זה אמור לאפשר למשתמש להפוך m עפרות מכיר כיצד גישות אלה מנוצלים אופנה צעד אחר צעד.
למרות מיפוי QTL ו רצף WGS מבוסס רצף SNP היו מספיקות כדי לזהות גן מועמד SNF r , ניסויים נוספים נדרשים כדי לאשר את תפקידה בהתנגדות סמים. זה יכול להיות משכנע הוכח באמצעות הפרעה גנים או טכניקות נוקאאוט, שניהם אשר ניתן להשיג באמצעות עריכת CRISPR / Cas9 הגן. שיטות מפורטות לשימוש CRISPR / Cas9 או ליצור מוטציות indel או להוסיף בונה מהונדס לתוך גן היעד T. gondii ניתנים. ספציפיות המיקוד אשר CRISPR / Cas9 מספק מגביר את היעילות של עריכת הגן על שיטות מסורתיות. כמו כן, זה גדל ביעילות אפשרה להשתמש זנים מותאמים שאינם במעבדה עבור מחקרים גנטיים שהיו בעבר קשה לשנות 13 . למרות בחיתוליו, CRISPR / Cas9 כבר נעשה שימוש כדי לגרום שיבושים גניםLass = "xref"> 2 , 13 , 17 , 18 , 48 , 49 , תג גנים 17 , ולעשות נוקאאוט גנים 16 , 19 , 50 , 51 , 52 , 53 , 54 ב T. gondii , מבטיח להיות כלי שימושי עבור מחקרים רבים אחרים בעתיד.
התגלית כי SNR1 inactivation מוביל התנגדות sinefungin עושה את האתר SNR1 אתר מבטיח עבור ההכנסה transgene או השלמה גנטית. כדי למקסם את ההצלחה של שימוש CRISPR / Cas9 בתיווך גנים מיקוד לכוון את השילוב של transgene לתוך לוקוס SNR1 , ההיבטים הבאים צריכים להיות consideאדום במהלך העיצוב הניסויי. ראשית, סמן בחירה מומלץ להיכלל בבנייה מהונדס כדי להגביר את היעילות של הבנייה זן. אם סמן הבחירה נכלל, הן בחירה חיובית והן שלילית ניתן להשתמש, וכתוצאה מכך כמעט 100% של הטפילים שנבחרו כפליים להיות מהונדס עם ממשלת ישראל משולב ב SNR1 לוקוס. לעומת זאת, אם המבנה המהונדס אינו מכיל תכונות ניתנות לבחירה נוספות, והוא מסתמך על בחירה שלילית במיקוד SNR1 , היעילות של transgenesis מוצלח תלויה במידה רבה ביעילות של cotransfection של הפלסמיד CRISPR ובבניה הטרנסגנית.
שנית, אם כי CRISPR / Cas9 בתיווך אינטגרציה ספציפית לאתר של קטע DNA לא הומולוגי משמש לעתים קרובות עבור השלמה ו transgenesis, יש לציין כי הכיוון של הכניסה לא יכול להיות מובטח במקרים כאלה כמו גם כיוון אפשרי. זה עלול להוות בעיהMs ליישומים מסוימים. לדוגמה, כדי להשלים את מוטציה עם אללים גנים שונים, קשה להבטיח כי כל אללים מוכנסים באותו כיוון, ועל פערים בכיוון עשוי לגרום להבדלים הביטוי. עבור סוג זה של יישום, בונה DNA עם רצפים הומולוגיים כדי מוקד SNR1 מומלץ, אשר יניע את הכיוון אינטגרציה נכונה ( איור 6 ).
שלישית, במהלך transfection, היחס בין הפלסמיד CRISPR לבין מולקולת הדנ"א הטרנסגני הוא קריטי עבור בנייה מוצקה מהונדס מהונדס. יחס זה צריך להיות מותאם על פי אסטרטגיות הבחירה. ההמלצות הבאות מומלצות: 1) אם המבנה המהונדס מכיל סמן עמיד לסמים והתרופה המתאימה היא הבחירה היחידה המשמשת ליצירת טפילים מהונדסים, כלומר sinefungin אינו בשימוש, יחס הטוחן המוצע בין המבנה המהונדס לבין הפלזמה CRISPRמזהה 1: 5. שימוש יותר CRISPR פלסמיד במקרה זה מגדיל את הסבירות כי טפילים המקבלים את המבנה המהונדס גם לקבל את הפלסמיד CRISPR, ולכן טפילים עמיד טילים נוטים יותר לקבל את הסמן מוכנס באתר הכוונה CRISPR. אם היחס הוא הפוך, רוב הטפילים המקבלים את המבנה המהונדס לא יקבלו את הפלסמיד CRISPR. כתוצאה מכך, הרוב המכריע של טפילים עמידים לתרופה להשיג את המבנה המהונדס באמצעות אינטגרציה אקראית לא קשור CRISPR / CAS9 בתיווך אתר ספציפי ההכנסה. 2) אם המבנה המהונדס מכיל סמן עמיד לסמים והתרופה המתאימה משמשת עם sinefungin לבחירת טפילים מהונדסים, היחס המוצע לטוחנות בין המבנה הטרנסגני לבין הפלסמיד CRISPR הוא 1: 1. אסטרטגיה זו מספקת את היעילות הגבוהה ביותר של בנייה זנים מהונדס. 3) אם המבנה המהונדס אינו מכיל יצרנית ניתנת לבחירה, בהסתמך על בחירה שליליתעל ידי sinefungin לבד כדי להשיג טפילים מהונדס, היחס המוצע טוחנת בין המבנה המהונדס לבין פלסמיד CRISPR הוא 5: 1. הרציונל לעיצוב זה הוא זהה להנחיה הראשונה לעיל. מאז הן pyrimethamine ו sinefungin שימשו לבחירה בפרוטוקול 5, היחס בין הגן מיני DHFR ו- SNR1 מיקוד CRISPR פלסמיד נקבע כמו 1: 1.
יחדיו, לשיטות המפורטות כאן יש רמת פירוט שלא ניתן היה להעביר בפרסום המקורי שזיהה SNR1 2 . פרוטוקולים אלה; במיוחד, תחביר שורת הפקודה, פריסה רציפה של תוכניות מנוצל, ואת השימוש של CRISPR / Cas9 צריך לסייע במאמצים בעתיד לזהות גנים חדשים אחראים פנוטיפים.
גילויים
המחברים מצהירים שאין להם אינטרסים פיננסיים מתחרים.
תודות
ברצוננו להודות ל 'דוד סיבלי ואסיס חאן על תרומתם לפרסום המקורי שעליו מבוססים הפרוטוקולים. עבודה זו מומנה על ידי המכון הלאומי לבריאות מענק AI108721.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| צלוחיות T25 | קורנינג | 430639 | |
| פיברובלסטים של עורלה אנושית (HFF) | ATCC | SCRC-1041 | |
| T. gondii זן ME49 | ATCC | 50840 | |
| T. gondiiזן VAND | ATCC | PRA-344 | |
| DMEM (ללא נתרן ביקרבונט) | מדעי החיים | 12800017 | |
| נתרן ביקרבונט | סיגמא אולדריץ' | S5761 | |
| HEPES | סיגמא אולדריץ' | H3375 | |
| סרום בקר עוברי (FBS) VWR International בדרגת פרימיום | 97068-085 | ||
| L-גלוטמין 200 מ"מ | סיגמא אולדריץ' | G7513 | |
| גנטמיצין (10 מ"ג/מ"ל) | Life Technologies | ||
| מגרד תאים 15710064 לצלוחיות | VWR International | 10062-904 | |
| מזרק 10 מ"ל | BD | 309604 | |
| מחטים קהות 22 גרם x 1 אינץ' | מוצרי BRICO | BN2210 | |
| מסנן גרעין 3.0 ומיקרו; m, 25 מ"מ | GE Healthcare | 110612 | |
| מחזיק מסנן Swin-Lok 25 מ"מ | GE Healthcare | 420200 | |
| Hemacytometer | Propper MFG | 90001 | |
| Sinefungin | Enzo Life Sciences | 380-070-M001 | |
| R | קרן R | https://www.r-project.org/ | |
| J/qtl | קבוצת צ'רצ'יל | http://churchill.jax.org/software/jqtl.shtml | |
| Bowtie2 | אוניברסיטת ג'ון הופקינס | http://bowtie-bio.sourceforge.net/bowtie2/index.shtml | |
| NCBI ערכת כלים SRA | NCBI | http://www.ncbi.nlm.nih.gov/Traces/sra/?view=toolkit_doc | |
| SAMtools | מכון וולקאם טראסט סנגר | http://www.htslib.org/ | |
| אוניברסיטת וושינגטון, סנט לואיס | http://varscan.sourceforge.net/ | ||
| MUMmer | JCVI & אוניברסיטת המבורג | http://mummer.sourceforge.net/ | |
| pSAG1::CAS9-U6::sgUPRT | Addgene | Plasmid #54467 | T. gondii פלסמיד CRISPR לחיתוך הגן UPRT |
| pSAG1::CAS9-U6::sg290860-6 | Addgene | Plasmid #59855 | T. gondii פלסמיד CRISPR לחיתוך הגן TG*_290860 SNR1 |
| pUPRT::D HFR-D | Addgene | Plasmid #58528 | תבנית עבור DHFR* מיני גן |
| Q5 ערכת מוטגנזה מכוונת אתר | ניו אינגלנד Biolabs | E0552S | |
| QIAprep ספין Miniprep Kit | QIAGEN | 27106 | |
| NanoDrop 2000 | Thermo Scientific | ND-2000 | |
| LB מרק | פישר סיינטיפיק | DF0446-07-5 | |
| אשלגן כלורי | סיגמא אולדריץ' | P9541 | |
| סידן כלורי | סיגמא אולדריץ' | 746495 | |
| אשלגן פוספט מונו-בסיסי | סיגמא אולדריץ' | P9791 | |
| אשלגן פוספט דו-בסיסי | סיגמא אולדריץ' | P5504 | |
| EDTA | סיגמא אולדריץ' | E5134 | |
| מגנזיום כלוריד | סיגמא אולדריץ' | M1028 | |
| אדנוזין טריפושפט (ATP) | סיגמא אולדריץ' | A6419 | |
| L-גלוטתיון (GSH) | סיגמא Aldrich | G4251 | |
| ECM 830 מערכת אלקטרופורציה | BTX | 45-0002 | |
| אלקטרופורציה Cuvette 4 מ"מ | מכשיר הרווארד | 45-0126 | |
| קריטל סגול | אלפא Aesar | B21932-14 | |
| 6 בארות TC צלחת | קורנינג | 353046 | |
| 24 בארות צלחת TC | קורנינג | 353935 | |
| כיסוי זכוכית 12 מ"מ עגולה | VWR International | 89015-724 | |
| 96 בארות TC צלחת | קורנינג | 353075 | |
| גיבסון ערכת שיבוט הרכבה (רב שבר) | ניו אינגלנד Biolabs | E5510S | |
| Q5 פולימראז בנאמנות גבוהה | ניו אינגלנד Biolabs | M0491S | |
| Pyrimethamine | TCI AMERICA | P2037-1G | השתמש בקוצר בעת שימוש בטפילים עמידים לפירימתאמין - ראה פרוטוקול |
מקורות
- Dubey, J. P. The history of Toxoplasma gondii--the first 100 years. J Eukaryot Microbiol. 55 (6), 467-475 (2008).
- Behnke, M. S., Khan, A., Sibley, L. D. Genetic Mapping Reveals that Sinefungin Resistance in Toxoplasma gondii Is Controlled by a Putative Amino Acid Transporter Locus That Can Be Used as a Negative Selectable Marker. Eukaryot Cell. 14 (2), 140-148 (2015).
- Dubey, J. P. History of the discovery of the life cycle of Toxoplasma gondii. Int J Parasitol. 39 (8), 877-882 (2009).
- Pfefferkorn, L. C., Pfefferkorn, E. R. Toxoplasma gondii: genetic recombination between drug resistant mutants. Exp Parasitol. 50 (3), 305-316 (1980).
- Donald, R. G., Roos, D. S. Insertional mutagenesis and marker rescue in a protozoan parasite: cloning of the uracil phosphoribosyltransferase locus from Toxoplasma gondii. Proc Natl Acad Sci U S A. 92 (12), 5749-5753 (1995).
- Sullivan, W. J. Jr Insertional tagging of at least two loci associated with resistance to adenine arabinoside in Toxoplasma gondii, and cloning of the adenosine kinase locus. Mol Biochem Parasitol. 103 (1), 1-14 (1999).
- Khan, A. Composite genome map and recombination parameters derived from three archetypal lineages of Toxoplasma gondii. Nucleic Acids Res. 33 (9), 2980-2992 (2005).
- Khan, A. NextGen sequencing reveals short double crossovers contribute disproportionately to genetic diversity in Toxoplasma gondii. BMC Genomics. 15 (1), 1168(2014).
- Shaik, J. S., Khan, A., Beverley, S. M., Sibley, L. REDHORSE-REcombination and Double crossover detection in Haploid Organisms using next-geneRation SEquencing data. BMC Genomics. 16 (1), 133(2015).
- Arends, D., Prins, P., Jansen, R. C., Broman, K. W. R/qtl: high-throughput multiple QTL mapping. Bioinformatics. 26 (23), 2990-2992 (2010).
- Langmead, B., Salzberg, S. L. Fast gapped-read alignment with Bowtie 2. Nat Methods. 9 (4), 357-359 (2012).
- Koboldt, D. C. VarScan 2: somatic mutation and copy number alteration discovery in cancer by exome sequencing. Genome Res. 22 (3), 568-576 (2012).
- Shen, B., Brown, K. M., Lee, T. D., Sibley, L. D. Efficient gene disruption in diverse strains of Toxoplasma gondii using CRISPR/CAS9. MBio. 5 (3), e01114(2014).
- Fox, B. A., Ristuccia, J. G., Gigley, J. P., Bzik, D. J. Efficient gene replacements in Toxoplasma gondii strains deficient for nonhomologous end joining. Eukaryot Cell. 8 (4), 520-529 (2009).
- Huynh, M. H., Carruthers, V. B. Tagging of endogenous genes in a Toxoplasma gondii strain lacking Ku80. Eukaryot Cell. 8 (4), 530-539 (2009).
- Wang, J. L. The Past, Present, and Future of Genetic Manipulation in Toxoplasma gondii. Trends Parasitol. , (2016).
- Sidik, S. M., Hackett, C. G., Tran, F., Westwood, N. J., Lourido, S. Efficient genome engineering of Toxoplasma gondii using CRISPR/Cas9. PLoS One. 9 (6), e100450(2014).
- Sugi, T., Kato, K., Weiss, L. M. An improved method for introducing site-directed point mutation into the Toxoplasma gondii genome using CRISPR/Cas9. Parasitol Int. , (2016).
- Behnke, M. S. Rhoptry Proteins ROP5 and ROP18 Are Major Murine Virulence Factors in Genetically Divergent South American Strains of Toxoplasma gondii. PLoS Genet. 11 (8), e1005434(2015).
- Barrangou, R. CRISPR provides acquired resistance against viruses in prokaryotes. Science. 315 (5819), 1709-1712 (2007).
- Garneau, J. E. The CRISPR/Cas bacterial immune system cleaves bacteriophage and plasmid DNA. Nature. 468, 67-71 (2010).
- Jinek, M. A programmable dual-RNA-guided DNA endonuclease in adaptive bacterial immunity. Science. 337 (6096), 816-821 (2012).
- Cong, L. Multiplex genome engineering using CRISPR/Cas systems. Science. 339 (6121), 819-823 (2013).
- Mali, P. RNA-guided human genome engineering via Cas9. Science. 339 (6121), 823-826 (2013).
- Jiang, F., Zhou, K., Ma, L., Gressel, S., Doudna, J. A. STRUCTURAL BIOLOGY. A Cas9-guide RNA complex preorganized for target DNA recognition. Science. 348 (6242), 1477-1481 (2015).
- Nishimasu, H. Crystal Structure of Staphylococcus aureus Cas9. Cell. 162 (5), 1113-1126 (2015).
- The R Project for Statistical Computing. , Available from: https://www.r-project.org (2016).
- Smith, R., Sheppard, K., DiPetrillo, K., Churchill, G. Quantitative trait locus analysis using J/qtl. Methods Mol Biol. 573, 175-188 (2009).
- The Churchill Group. , J/qtl. http://churchill.jax.org/software/jqtl.shtml (2013).
- Li, H. The Sequence Alignment/Map format and SAMtools. Bioinformatics. 25 (16), 2078-2079 (2009).
- Kurtz, S. Versatile and open software for comparing large genomes. Genome Biol. 5 (2), (2004).
- Gajria, B. ToxoDB: an integrated Toxoplasma gondii database resource. Nucleic Acids Res. 36 (Database issue), D553-D556 (2008).
- Heigwer, F., Kerr, G., Boutros, M. E-CRISP: fast CRISPR target site identification. Nat Methods. 11 (2), 122-123 (2014).
- Roos, D. S. Molecular genetic tools for the identification and analysis of drug targets in Toxoplasma gondii. Curr Top Microbiol Immunol. 219, 247-259 (1996).
- Soldati, D., Boothroyd, J. C. Transient transfection and expression in the obligate intracellular parasite Toxoplasma gondii. Science. 260 (5106), 349-352 (1993).
- Lander, E. S., Botstein, D. Mapping mendelian factors underlying quantitative traits using RFLP linkage maps. Genetics. 121 (1), 185-199 (1989).
- Saeij, J. P. Polymorphic secreted kinases are key virulence factors in toxoplasmosis. Science. 314 (5806), 1780-1783 (2006).
- Saeij, J. P. Toxoplasma co-opts host gene expression by injection of a polymorphic kinase homologue. Nature. 445 (7125), 324-327 (2007).
- Rosowski, E. E. Strain-specific activation of the NF-kappaB pathway by GRA15, a novel Toxoplasma gondii dense granule protein. J Exp Med. 208 (1), 195-212 (2011).
- Reese, M. L., Zeiner, G. M., Saeij, J. P., Boothroyd, J. C., Boyle, J. P. Polymorphic family of injected pseudokinases is paramount in Toxoplasma virulence. Proc Natl Acad Sci U S A. 108 (23), 9625-9630 (2011).
- Taylor, S. A secreted serine-threonine kinase determines virulence in the eukaryotic pathogen Toxoplasma gondii. Science. 314 (5806), 1776-1780 (2006).
- Behnke, M. S. Virulence differences in Toxoplasma mediated by amplification of a family of polymorphic pseudokinases. Proc Natl Acad Sci U S A. 108 (23), 9631-9636 (2011).
- Lorenzi, H. Local admixture of amplified and diversified secreted pathogenesis determinants shapes mosaic Toxoplasma gondii genomes. Nat Commun. 7, 10147(2016).
- Gubbels, M. J. Forward genetic analysis of the apicomplexan cell division cycle in Toxoplasma gondii. PLoS Pathog. 4 (2), e36(2008).
- Farrell, A. A DOC2 protein identified by mutational profiling is essential for apicomplexan parasite exocytosis. Science. 335 (6065), 218-221 (2012).
- Coleman, B. I., Gubbels, M. J. A genetic screen to isolate Toxoplasma gondii host-cell egress mutants. J Vis Exp. (60), (2012).
- Walwyn, O. Forward genetics screens using macrophages to identify Toxoplasma gondii genes important for resistance to IFN-gamma-dependent cell autonomous immunity. J Vis Exp. (97), (2015).
- Rugarabamu, G., Marq, J. B., Guerin, A., Lebrun, M., Soldati-Favre, D. Distinct contribution of Toxoplasma gondii rhomboid proteases 4 and 5 to micronemal protein protease 1 activity during invasion. Mol Microbiol. 97 (2), 244-262 (2015).
- Varberg, J. M., Padgett, L. R., Arrizabalaga, G., Sullivan, W. J. Jr TgATAT-Mediated alpha-Tubulin Acetylation Is Required for Division of the Protozoan Parasite Toxoplasma gondii. mSphere. 1 (1), (2016).
- Zheng, J., Jia, H., Zheng, Y. Knockout of leucine aminopeptidase in Toxoplasma gondii using CRISPR/Cas9. Int J Parasitol. 45 (2-3), 141-148 (2015).
- Long, S., Wang, Q., Sibley, L. D. Analysis of Noncanonical Calcium-Dependent Protein Kinases in Toxoplasma gondii by Targeted Gene Deletion Using CRISPR/Cas9. Infect Immun. 84 (5), 1262-1273 (2016).
- Wang, K. Identification of Novel O-Linked Glycosylated Toxoplasma Proteins by Vicia villosa Lectin Chromatography. PLoS One. 11 (3), e0150561(2016).
- Yang, M., Zheng, J., Jia, H., Song, M. Functional characterization of X-prolyl aminopeptidase from Toxoplasma gondii. Parasitology. , 1-7 (2016).
- Zhang, W. Analysis of the virulence determination mechanisms in a local Toxoplasma strain (T.gHB1) isolated from central China. Parasitol Res. , (2016).
הדפסות חוזרות והרשאות
