מעקב eyeblink התניה קלאסית (ECC) נעשה שימוש כדי להעריך בהיפוקמפוס תלויי למידה associative בחולדות למבוגרים שהיו מנוהל ריכוז גבוה (11.9% v/v) של אלכוהול במהלך התפתחות המוח neonatal מוקדמת. באופן כללי, ECC שגרות הן כלי אבחון קול לגילוי חוסר תפקוד המוח על-פני הגדרות רבות הביו-רפואית ופסיכולוגית.
מאמר שיטה
השימוש של התניה קלאסית Eyeblink מעקב כדי להעריך תפקוד בהיפוקמפוס במודל של עכברים של אלכוהול עוברית ספקטרום הפרעות
במאמר זה
סיכום
תקציר
חולדות neonatal נוהלו ריכוז גבוה יחסית של ספירט אתיל (11.9% v/v) כמחנכת בימים 4-9, זמן עובר שינוי ארגוני מהירה ומתי דומה למוח העובר מואצת שינויים במוח המתרחשים במהלך השליש השלישי בבני אדם. מודל זה של הפרעות הספקטרום אלכוהול עוברית (FASDs) מייצרת נזק מוחי חמור, מחקה את הכמות ואת התבנית של שתייה מרובה המתרחשת בכמה אלכוהוליסטיות בהריון. אנו מתארים את השימוש התניה קלאסית eyeblink מעקב (ECC), משתנה מיומנויות של למידה associative, כדי להעריך את תפקוד בהיפוקמפוס לטווח ארוך זה נתפסת בדרך כלל בצאצאים למבוגרים החשופים אלכוהול. ב 90 ימים של גיל, מכרסמים התכוננו בניתוח עם הקלטת, אלקטרודות מגרה, אשר נמדד electromyographic (EMG) למצמץ פעילות של שריר העפעף השמאלי ומסר מתון זעזועים אחורי לעין שמאל, בהתאמה. לאחר תקופת ההחלמה של חמישה ימים, הם עברו שישה מפגשים של מעקב ECC כדי לקבוע associative learning. ההבדלים בין אלכוהול חשופים ולשלוט חולדות. מעקב ECC הוא אחד אפשרי ECC הליכים רבים שניתן בקלות לשנות באמצעות ציוד באותה התוכנה, כך יכול להיות מוערך מערכות עצביות שונות. ECC הליכים באופן כללי, יכול לשמש כלי אבחון לגילוי פתולוגיות עצבית מערכות שונות במוח והתנאים שונים, זה להעליב את המוח.
מבוא
קשה לדמיין שבעידן של ימינו, עם שירותי בריאות טובים יותר וגישה לשירותי רפואה, עישון ושתיית אלכוהול מופרזים נותרים בעיה בריאותית עולמית מרכזית. לרוע המזל, הוכח כי אם בהריון הצורכת כמות גבוהה של אלכוהול עלולה ללדת ילד עם נזק מוחי חמור והפרעות נוירו-התפתחותיות הנמשכות לאורך כל החיים, כפי שניכר אצל הסובלים מתסמונת אלכוהול עוברית (FAS)1,2,3. בנשים עם היסטוריה מאושרת של שימוש באלכוהול במהלך ההיריון, העובר המתפתח רגיש גם לכמויות קטנות של אלכוהול או לדפוסי צריכה שונים הגורמים להבדלים משתנים בריכוזי האלכוהול בדם. במקרה האחרון, בעוד שהילדים עשויים שלא להפגין שיבושים מורפולוגיים או נוירו-התנהגותיים חמורים כמו אלו עם FAS, הם עדיין עשויים להפגין מוגבלויות קוגניטיביות והפרעות רגשיות לכל החיים, הנעות בין קלות לחמורות3,4. יחד, FAS וצורות פחות חמורות של שיבושים טרום-לידתיים הנגרמים מאלכוהול מהוות את קבוצת הפרעות הספקטרום של אלכוהול עוברי (FASDs). אין זה מפתיע שניתן למנוע לחלוטין את ה-FASDs, אך באופן מדהים ההערכות מראות כי באוכלוסיות שבהן שימוש מופרז באלכוהול הוא נפוץ למדי, הם נותרים הגורם הלא-גנטי העיקרי למוגבלות עצבית וקוגניטיבית, ומשפיעים על כ-2% עד 5% מהילדים הצעירים בארה"ב ובמדינות אירופיות כגון צרפת ושבדיה. בכל הנוגע לשכיחות של FAS לבדו בארה"ב, השכיחות היא 2 עד 7 לכל 1,0 לידות חיים5, מה שמרמז כי השכיחות הכוללת של FASDs גבוהה בהרבה מזו של FAS.
מחקרים של דימות מוחי שנערכו בילדים עם FASDs הראו כי הם מציגים anomalias מוחיות, כגון קורפוס קלוסום (corpus callosum) דק יותר6, ורמיס צברורי קדמי (anterior cerebellar vermis) קטן יותר7, והיפוקמפוס קטן יותר8. פגמים מוחיים אלו מהווים את הבסיס לכשלי תפקוד נוירו-קוגניטיביים ארוכי טווח הנצפים בילדים עם FASDs. הקשרים המדויקים הקושרים בין שינויים במוח המתווכים על ידי צריכת אלכוהול של האם לבין השונות בפרופיל (כלומר, סוג והיקף) של ליקויים נוירו-קוגניטיביים ספציפיים טרם נקבעו באופן ברור. עם זאת, כנקודת פתיחה, ההיפוקמפוס הוא מועמד מצוין לבחינת רגישותו להשפעות אלכוהול טרום-לידתיות. ואכן, ילדים עם FASDs מראים גירעונות בהתנהגויות המתווכות על ידי ההיפוקמפוס, כגון למידת מיקום9,10 ושליפת חפצים מושהית1.
מודלים של מכרסמים להפרעות הספקטרום של תסמונת האלכוהול העוברית (FASDs) הוכחו כבעלי ערך רב בהבהרת המנגנוים המובילים לשיבושים נוירו-קוגניטיביים הנצפים בילדים עם FASDs. מודל חשיפה לשתייה מרובה (binge-exposure) מבוס שאימצנו כולל מתן אלכוהול לחולדות במהלך הימים הפוסט-נטאלים 4-9.12,13תקופה שבה המוח עובר יצירה מהירה של סינפסים ומגעים דנדריטיים, בדומה לשבוע 24 של העוובר האנושי, ונמשכת עד לשבוע ה-3rd שליש הריון14,15,16,17מודל ספציפי זה גורם לאובדן משמעותי של נוירונים בהיפוקמפוס18,19 ונוירונים באזורי מוח רבים אחרים, כגון המוח הקטן (cerebellum)12,13,14,15,16,17,18,19,20,21,22,23, בליווי פגיעות קשות בתפקודים קוגניטיביים המקיפות תחומים שונים21,24,25ניתן להעריך שיבוש קוגניטיבי כתוצאה מחשיפה מוקדמת לאלכוהול בחולדות בדרכים שונות, ובמיוחד באמצעות התניית קלאסית של הבהוב עיניים (ECC). ECC היא פרדיגמה ששימשה במשך למעלה ממאה שנה כדי לחקור באופן מדעי את הבסיס היסודי של הלמידה26,27 וכך, הוא מספק שיטה שימושית להבנה טובה יותר של ההשלכות הנוירו-קוגניטיביות השליליות הנובעות מחשיפה לעשכולית (אלכוהול) בשלב העוברי. זהו פרדיגמה גמישה מאוד המאפשרת לחוקרים להשתמש במגוון הליכי ECC שונים, שכל אחד מהם ניתן לבחון במינים יונקיים רבים לאורך הסולם הפילוגנטי (מעכברים ועד בני אדם) ובשלבים שונים של התפתחות המוח.28,29,30,31יתרה מכך, המעגלים העצביים הבסיים המתווכים למידה אסוציאטיבית בפרדיגמה זו נתמכים על ידי דיווחים ניסויים ונוירופסיכולוגיים באותם מינים.26,32,33,34,35,36,37.
סוג אחד של ECC, ה-trace ECC, מודגם במאמר זה (איור 1). כדי לספק הקשר, הוא מושווה לצורה המסורתית יותר - delay ECC. פרדיגמת ה-ECC מודלה לאחר התניה קלאסית באמצעות כלבים, שבוצעה לראשונה על ידי הפיזיולוג זוכה פרס נובל, איבן פבלוב. פבלוב גילה שגירויים מסוימים, כגון צלילים, אינם מעוררים באופן טבעי הפרשת רוק, אך כאשר הם קודמים לחלוקת מזון וחופפים לה, תגובת הפרשת הרוק יכולה להתחזק מהצגה חוזרת של השניים, בתנאי שקשר זה בין הצליל למזון נשמר. זוהי דוגמה ל-delay ECC, תחת התפיסה שעוצמה אסוציאטיבית מתווכת על ידי סמיכות זמנית מיידית בין שני הגירויים, ובכך הופכת את תנאי הלמידה לאופטימליים עבור בעל החיים. הוא בדק גם וריאציות אחרות של הקשר בין הצליל למזון, כגון כיבוי הצליל והשארת תקופת "עקבה" (trace) לפני מתן המזון. כאשר שני הגירויים הללו היו רחוקים מספיק זה מזה, הפך הדבר לקושי רב יותר עבור הכלבים להפגין תגובות של הפרשת רוק לפני מתן המזון. חוסר הסמיכות בין כיבוי הצליל לבין מתן המזון הוא אפוא דוגמה ל-trace ECC. מכיוון שמכרסמים אינם מפרישים רוק באופן טבעי לנוכחות מזון, נעשה שימוש בגירויים רלוונטיים יותר למין, כגון שוק חשמלי קל; הם גם אינם מפגינים באופן טבעי תגובות הגנה של מצמוץ עיניים לצלילים. על רקע זה, פרוצדורות ECC במכרסמים כוללות הצגת צליל ברמה מסוימת של דציבלים והצמדתו באופן מסוים לשוק קל לשריר העפעף (orbicularis oculi) או לשריר ה-temporalis כדי לעורר תגובת מצמוץ. הצליל נחשב לגירוי מותנה (CS), בעוד שהשוק נחשב לגירוי לא מותנה (US). ב-delay ECC, ה-CS מוצג תחילה; גירוי זה נשאר פעיל למשך זמן מסוים. לאחר מכן, ניתן ה-US. שני הגירויים הללו חופפים למשך זמן מסוים, ולאחר מכן שניהם מסתיימים בו-זמנית; תגובת המצמוץ הנובעת מה-US נחשבת לתגובה לא מותנה (UR). בפרוצדורה זו, מכרסמים לומדים להפגין תגובות מצמוץ זמן מה לאחר הצגת ה-CS, אך רגע לפני ה-US, כדי לצפות גירוי דוחה זה. תגובת המצמוץ הנלמדת מכונה תגובה מותנית (CR). ב-trace ECC, ה-CS וה-US מופרדים על ידי פרק זמן נטול גירויים המכונה מרווח עקבה (trace); הם אינם חופפים בזמן כפי שקורה ב-delay ECC. במהלך מרווח זה, בעל החיים נדרש לפתור את הדרישות האסוציאטיביות בין הגירויים. בדומה ל-delay ECC, למידה מתרחשת כאשר בעל החיים מפגין באופן עקבי תגובת מצמוץ לאחר כיבוי ה-CS, אך מיד לפני מתן ה-US. לאורך כמות מסוימת של אימון רכישה (CS המוצמד ל-US), מתפתחות עקומות למידה (כלומר, על בסיס מדידות CR שונות). מחקרי נשקים (lesion) והדמיה עצבית מראים כי למידה מוצלחת ב-delay ECC תלויה בקיומן של מעגלים עצביים תקינים בין המוח הקטן לגזע המוח38,39,40, בעוד ש-trace ECC הוא פרוצדורה מסדר גבוה יותר הדורשת מעורבות עצבית נוספת מההיפוקמפוס41,42,43,4 וממבנים קליפתיים אחרים45,46. בשל הדרישות הקשורות לתזמון הדרושות כדי לרכוש תגובות trace CR בהצלחה, משימה זו היא גם קשה יותר ללמידה (אפילו עבור נבדקים נורמליים).
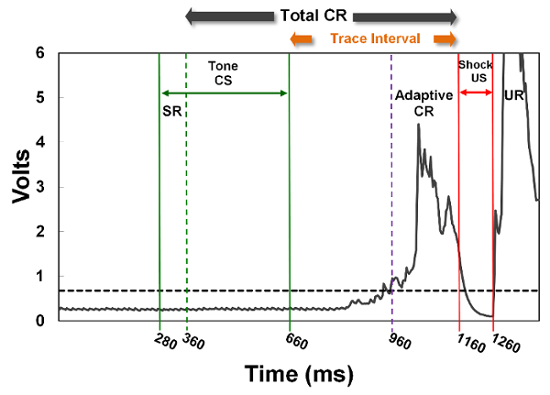
איור 1: התנייה קלאסית של ממצמץ עיניים. מוצגת צורת גל מייצגת של חולדה בוגרת מקבוצת הביקורת ללא אינטובציה (UC). תחילה מוצג גירוי מותנה (CS) בצורת צליל (85 dB, 2.8 kHz) למשך 380 מילי-שניות. לאחר מכן חל מרווח מעקב (trace interval) של 50 מילי-שניות, שבו לא מוצגים גירויים. לאחר מכן ניתן גירוי לא מותנה (US) בצורת שוק חשמלי (1.6 mA) למשך 10 מילי-שניות. למידה מוצלחת במטלה זו מתרחשת כאשר התדירות (%) או העוצמה (בוולטים) של מצמוצי עיניים במהלך חלון הזמן של התגובה המותנית (CR) (תקופת CR כוללת) עולות לאורך מפגשי אימון רביםים. בפרט, מכרסמים בעלי היפוקמפוס תקין יפגינו בדרך כלל יותר תגובות מותניות בעיתוי מדויק (Adaptive CRs) רגע לפני תחילת ה-US של השוק החשמלי (בתוך חלון של 20 מילי-שניות). נמדדות גם תגובות הדמאה (SRs) במהלך 80 המילי-שניות הראשונות לאחר תחילת ה-CS של הצליל, ותגובות לא מותנות (URs). תגובות SR שאינן אסוציאטיביות הן בדרך כלל נמוכות או אינן קיימות במכרסמים מאומנים היטב, בעוד ש-URs צפויות להיות גבוהות בתדירותן ובעוצמתן. מטלה זו דורשת מהמכרסם ללמוד לגשר על הקשר שבין סיום ה-CS לתחילת ה-US (במהלך מרווח המעקב), ולכן היא קשה יותר להשגה מטבעה בהשוואה ל-ECC מסוג עיכוב (delay ECC). אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
כאן אנו מדגימים את ההשלכות התפקודיות השליליות של חשיפה לאלכוהול בתקופת היילוד המוגשת באופן הדומה לשתייה מרוכזת (binge-like), כפי שנקבע באמצעות הליך trace ECC המעניק גירוי מותנה (CS) של צליל בעוצמה של 85 dB (בתדר 2.8 kHz) שנמשך 380 ms, ולאחריו גירוי לא מותנה (US) של שוק חשמלי בעוצמה של 1.6 mA שנמשך 10 ms, כאשר גירויים אלו מופרדים על ידי תקופת מעקב (trace period) של 50 ms. דיווחנו על התועלת של בדיקה התנהגותית זו במחקרים קודמים שבחנו התערבות באמצעות כולין ותוספי ברזל להפחתת ההשפעות של חשיפה לאלכוהול בתקופת היילוד18,47. למעשה, ניתן להשתמש ב-trace ECC ככלי אבחוני להערכת פתולוגיה של ההיפוקמפוס המושרה על ידי אלכוהול בתקופת היילוד. היתרון שיש לו על פני delay ECC הוא רגישות גבוהה יותר לזיהוי הפרעות בתפקוד ההיפוקמפוס, הפגוע בבני אדם עם FASDs.
הדגמה של ECC חורגת הרבה מעבר לתחום של אלכוהול עוברי. ניתן להשתמש בווריאנטים רבים של ECC (למשל, השהיה, עקבה, תרכובת, היפוך) כדי להשקיף על הבדלים אונטוגנטיים בלמידה לאורך ההתפתחות, הבסיס הנוירוביולוגי של למידה אסוציאטיבית ביונקים רגילים, כמו גם את הפגיעויות של מערכות מוחיות שונות לאתגרים רבים, כולל (אך לא רק) טרטוגנים, רעלים סביבתיים, פגיעות ראש טראומטיות, מחלות נוירודגנרטיביות ומצבים פסיכיאטריים.
פרוטוקול
הערה: כל הפרוצדורות אושרו ובוצעו בהתאם למדיניות שנקבעה על ידי ה-IACUC של East Carolina University. חולדות Long-Evans הופקו מנקבות שהזווגו עם זכרים רבייה. גורים מכל שלוש קבוצות הטיפול (ראו 1.1) הופקו משאחור מאותה אם. הופקו חמישה שחורים, וכל שחור דולל ל-8 גורים ביום לאחר הלידה (PD) 3. שני הגורים שנותרו מכל שחור הוקצו לניסויים נפרדים. צאצאים זכרים ונקבות (אחד לכל קבוצת חשיפה) נכללו במחקר. בסך הכל נבחנו N = 27 צאצאים בוגרים במחקר זה; 3 חולדות הוצאו מהמחקר בשל קריאת חוטי 3T שבורים (ראו 3.1.1) שלא ניתן היה לתקן ביום 1 של אימון ה-ECC.
1. הכנה של קבוצות, חומרים ותמיסות
- ביום PD 3, הוציאו את הגורים מהאם והניחו אותם על פד חימום במים עם ויסות תרמי כדי לשמור על חום גופם. השתמשו בהליך בחירה אקראי כדי לחלק את גורי החולדה לאחת משלוש קבוצות: (1) אינטובציה של אלכוהול (AI); (2) ביקורת אינטובציה דמה (SI); או (3) ביקורת ללא אינטובציה (UC). בצעו את הליכי הזיהוי המאושרים, כגון קעקוע דיו [שאינו רעיל] על כפות רגליהם באמצעות מחט 30G x 1/2 in בהתאם לסכימת מספור. החזירו את הגורים לאם לאחר סיום הקעקוע.
- הכינו צינור (או צינורות) לאינטובציה תוך-קיבית באמצעות פוליאתילן (PE) בגדלים 50 ו-10. האורך הכולל של צינור זה תלוי במשתמש וניתן להתאמה בהתאם.
- השתמשו במספרי מיקרו-דיסקציה כדי לחתוך חתיכה של 3 in של צינור PE-50 וחתיכה של 6 in של צינור PE-10.
- חברו בזהירות את צינור ה-PE-50 למחט תת-עורית סטרילית 2 G x 1 in.
- הכניסו קצה אחד של צינור ה-PE-10 אל הקצה הפתוח של צינור ה-PE-50. ייתכן שיה צורך בחיתוך אלכסוני בקצה צינור ה-PE-10 כדי להכווין אותו לתוך צינור ה-PE-50.
- חתכו חתיכה קטנה של צינור PE-50 (כ-2-3 mm) והשחילו אותה על הקצה הפתוח של צינור ה-PE-10. חתיכה זו תשמש כמעצור ויזואלי.
- אחסנו את צינור האינטובציה התוך-קיבית המלא באלכוהול איזופרופיל 70% טרי כדי לשמור עליו סטרילי.
- בצעו הליכים אספטיים להכנת תמיסת חלב מלאי בבקבוקים של 50 mL. תמיסת החלב המלאאית מבוססת על פורמולת תזונה שנקבעה לראשונה על ידי West et al. (1984)48. אחסנו את הבקבוקים בטמפרטורה של -18 °C עד למועד השימוש. הפשיתו שני בקבוקי חלב באמצעות מים חמימים לפני השימוש.
- שאבו 7.16 mL של אתיל אלכוהול 95% (USP) באמצעות מזרק סטרילי והוסיפו אותו לבקבוק חלב אחד של 50 mL. פעולה זו יוצרת תמיסת אלכוהול בריכוז 1.9% v/v המוענקת לגורי חולדה במהלך שתי ההאכלות הראשונות של היום (ראו 2.1.1); המנה היומית הכוללת של אלכוהול היא 5.25 g/kg/day. היא נועדה להעביר את האלכוהול בנפח (0.0278 mL/g להאכלה) בתמיסת חלב מועשרת.
הערה: ניתן להתאים כמות זו בהתאם לגודל השגרה והשימוש הצפוי לאורך 3-4 ימים. יש להתאים גם את כמות האלכוהול המתווספת כדי ליצור תמיסה של 11.9% v/v. - נערה בקבוק זה היטב וסמנו אותו בהתאם (כלומר, 1.9% v/v אתיל אלכוהול בחלב).
- סמנו את בקבוק החלב השני (ללא תוספת אלכוהול) בהתאם (למשל, חלב בלבד) והשתמשו בו להאכלות משלימות כפי שצוין ב-2.1.1.
- אחסנו את שני בקבוקי החלב במקרר.
- שאבו 7.16 mL של אתיל אלכוהול 95% (USP) באמצעות מזרק סטרילי והוסיפו אותו לבקבוק חלב אחד של 50 mL. פעולה זו יוצרת תמיסת אלכוהול בריכוז 1.9% v/v המוענקת לגורי חולדה במהלך שתי ההאכלות הראשונות של היום (ראו 2.1.1); המנה היומית הכוללת של אלכוהול היא 5.25 g/kg/day. היא נועדה להעביר את האלכוהול בנפח (0.0278 mL/g להאכלה) בתמיסת חלב מועשרת.
2. חשיפה לאלכוהול בימים הראשונים לאחר הלידה (ימים פוסטנטליים 4-9)
- בצעו עבור גורי AI ו-SI סך הכל 4 אינטובציות ליום, החל מיום גיל (PD) 4. הפרידו בין כל אינטובציה במרווח של 2 שעות. מאחר שגורי AI מקבלים אינטובציה עם תמיסה ממשית, כל אחת מהאינטובציות שלהם נחשבת להאכלה.
- בצעו אינטובציה לגורי AI עם תמיסת Ethyl Alcohol בריכוז 1.9% v/v בחלב במהלך שתי ההאכלות הראשונות של היום, ולאחר מכן בצעו אינטובציה עם תמיסת חלב בלבד במהלך שתי ההאכלות האחרונות של היום כדי להשלים את צמיחתם.
- בצעו אינטובציה לגורי SI 4 פעמים ללא תמיסה, בכל שעתיים, כדי להבטיח משך חשיפה זהה לצינור PE-10 כפי שחווים גורי AI. קבוצת UC אינה מקבלת אינטובציות.
- הוציאו את הגורים מהאם והניחו אותם על משטח חימום מים מבוקר טמפרטורה כדי לשמור על חמימותם. שקלו כל גור ורשמו את משקל הגוף שלו (ב-g). עיינו בטבלת האכלה מוכנה מראש כדי לקבוע את נפח האינטובציה עבור כל גור AI ורשמו זאת בגיליון הרישום.
- הניחו את תמיסת ה-Ethyl Alcohol בריכוז 1.9% v/v בחלב באמבט מים חמים ונערו היטב.
- הליך אינטובציה תוך-קיבית (Intragastric):
- שטפו היטב במים חמים את צינור האינטובציה התוך-קיבית שאוחסן באיסופרופנול 70%.
- שאבו את כמות התמיסה הנכונה באמצעות מזרק סטרילי של 1 mL.
- טבלו את קצה צינור האינטובציה (קצה ה-PE-10) בשמן תירס טרי (פעולה זו מקלה את ההחדרה).
- מדדו את אורך צינור ה-PE-10 מפיו של הגור ועד לקיבתו. התאימו את סתירי ה-PE-50 כדי לשמש כסימון לנקודת העצירה.
- החדירו בזהירות את צינור ה-PE-10 לפיו של הגור, העבירו אותו במורד הוושט, חלפו קלות דרך הספינקטר הגסטרו-אוזופגיאלי, והכניסו לתוך הקיבה. בחנו את הגור, ייצבו אותו, ולחצו על בוכנת המזרק להגשת התמיסה. בצעו זאת בקצב איטי.
הערה: כדי למנוע החדרה מקרית של הצינור לקנה הנשימה, כוונו תחילה את הצינור כך שיקשת וייגע בחך הרך לפני ההמשך קדימה. השתמשו בחך כמדריך, שכן הצינור יסטה באופן טבעי מאזור זה ויכוון למורד הוושט. אחרת, כל סטייה משמעותית של הקצה לכיוון הגבי (ventrally) עלולה לגרום לו להיכנס לקנה הנשימה. מומלץ להוציא את הצינור ולא להמשיך באינטובציה אם אינכם בטוחים במיקום ההחדרה - הכניסו את הצינור שוב בצורה נכונה בניסיון הבא. - הוציאו בזהירות את צינור ה-PE-10 ובחנו את הגור לאיתור שאריות תמיסה, דם או פגיעה פיזית. החזירו את הגור למסגרת השבבים אם מצבו תקין. כל הליך האינטובציה אורך פחות מ-1 דקה לכל גור, ובסך הכל כ-4 דקות עבור 4 הגורים המטופלים באינטובציה בכל שגרייה (2 AI, 2 SI).
- הליך אינטובציה תוך-קיבית לגורי SI: בצעו את אותה פרוצדורת החדרה של PE-10 כפי שנעשה עבור גורי AI, אך ללא תמיסה ולמשך אותו זמן (1 דקה).
- החזירו את כל הגורים לאם מיד לאחר השלמת הפרוצדורות לגור האחרון בשגרייה. החזירו את האם לסולריום עד לסשן ההאכלה הבא (בעוד 2 שעות).
- שטפו את צינור האינטובציה התוך-קיבית במים סטריליים חמים והחזירו אותו לאיסופרופנול 70% לאחסון. שטפו את הצינור היטב במים לפני כל סשן האכלה.
- חזרו על שלבים 2.2 (מלבד שקילת הגורים) עד 2.2.2.9 עבור סשן ההאכלה השני. בשתי ההאכלות האחרונות, בצעו אינטובציה לגורי AI עם תמיסת חלב בלבד, תוך שימוש בנפחי האינטובציה שנקבעו בסעיף 2.2.
- שקלו את החולדות במרווחי זמן קבועים, כגון ב-PD 15 (בעת פתיחת העיניים), PD 21 (גמילה), PD 30, PD 60, ו-PD 90 (ניתוח), כדי לקבל עקומות צמיחה מייצגות.
3. ייצור ושינוי של אלקטרודות
- הכינו "ראש-חומרה" (headstage) אלקטרומיוגרפי (EMG) אחד עבור כל חולדה (איור 2). ראש-החומרה מאפשר הקלטה של תגובות ממצמץ העין באמצעות מערכת ממצמץ העין (איור 4).
- בנו ראש-חומרה המורכב משני חוטים של פלדה אל-חלודה מצופים בפוליטראפלואורואתילן (PTFE) בגודל 3T (כל אחד באורך 5 cm), חוט פלדה אל-חלודה אחד מצופה ב-PTFE בגודל 10T (באורך 5 cm), שלושה פיני מגע זכריים, ומבודד שקע מיקרו-סטריפ (micro strip socket insulator) שקוצץ ל-3 חורים (ראו סעיף 3.1.4).
- הסירו את ציפוי ה-PTFE מחוט ה-10T על ידי אחיזת המרכז עם פינצטה משוננת בעלת דיוק גבוה והסרת הציפוי לשני הכיוונים באמצעות פינצטה חלקה בעלת דיוק גבוה. ודאו שכל עקבות הציפוי הוסרו מחוט זה.
- מצו (crimp) קצה אחד של חוט ה-10T לפין מגע באמצעות פלייר דנטלי בעל פלטפורמה משוננת; זה ישמש כחוט הארקה. אחזו בזהירות חוט 3T בעזרת הפינצטה החלקה בעלת הדיוק הגבוה במרחק של 1 עד 1.5 mm מקצה אחד. הסירו את ציפוי ה-PTFE באורך 1 עד 1.5 mm תוך השארת שאר הציפוי שלם. מצו פין מגע לקצה החשוף של חוט ה-3T.
- בצעו את אותם ההליכים עבור חוט ה-3T השני. שני החוטים ישמשו כמובילים החיוביים והשליים של אלקטרודות ההקלטה של ה-EMG.
- בצעו בדיקות משיכה לכל החוטים כדי לוודא שהם מקובעים לפינים. היזהרו לא לכופף או להזיק לחוטים.
- גזרו מקטע של פס מבודד שקע עד ל-3.5 חורים (גזרו את מרכז החור הרביעי) בעזרת להב החיתוך של מקלף חוטים. קצצו מקטע זה ל-3 חורים מלאים בלבד ושייפו את שני הצדדים במידת הצורך. דבר זה מסייע להבטיח ש-3 חורים מלאים זמינים. הכניסו את יחידות הפין-חוט לשלושת החורים של המיקרו-סטריפ עד שהקצוות הממוצצים יהיו בקו אחד עם הקצה התחתון של מקטע המבודד. על הרכבת ה-10T להיות באחד החורים החיצוניים של המיקרו-סטריפ ולא במרכז.
- שנו אלקטרודות גירוי ביפולריות (איור 2).
- הקצו לכל חולדה אלקטרודה מגורית ביפולרית אחת. אלקטרודה זו מעבירה כמות קטנה של זרם חשמלי באמצעות מבודד גירוי (ראו מערכת ממצמץ העין) כגירוי לא מותנה (US) של הלם במהלך ECC. האלקטרודות נרכשות מיצרן בצורה מלופפת והן ממוגנות.
- פתחו את הלפופים של שני המובילים המתכתיים 2-3 פעמים כדי ליצור צורה של V (מפתח של 5 mm) ולאחר מכן השתמשו בפינצטה החלקה בעלת דיוק גבוה כדי ליישר כל "שן" ככל האפשר. גרדו 1 mm של מיגון מקצה כל שן (מסביב לכל הקצה) בעזרת להב תער. בדקו כל שן לאי-סדירויות וכיפופים, ותקנו במידת הצורך ללא גרד נוסף של המיגון.
- הסירו שמן ייצור ושאריות זרות מראשי-החומרה של ה-EMG ומהאלקטרודות הביפולריות על ידי שטיפתם ב-95% אתנול. המתינו להתייבשות ולאחר מכן בצעו עיקור באוטוקלאב.
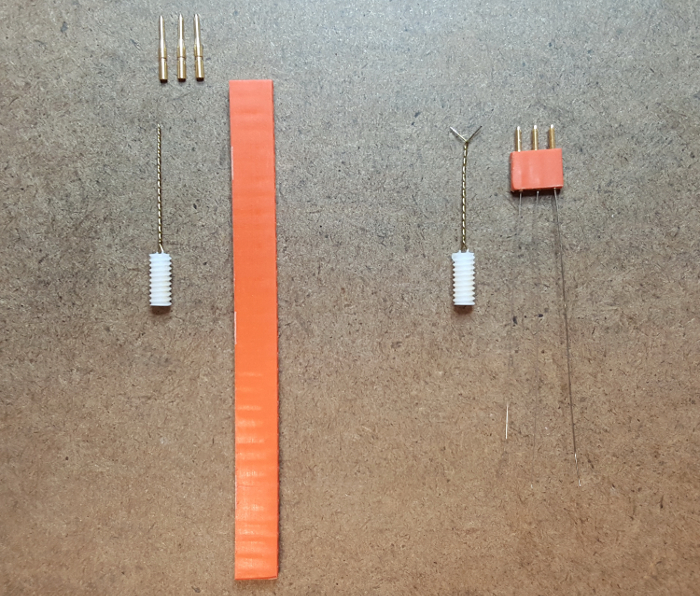
איור 2אלקטרודות להקלטה אלקטרומיוגרפית (EMG) ואלקטרודה דו-קוטבית. ראש המגבר (headstage) של ה-EMG המושלם (מימין, כתום) מורכב משלושה פיני מגע זכרים, שני חוטים בעטוף PTFE בגודל 3T, חוט אחד בעטוף PTFE בגודל 10T ופס מיקרו (micro strip) שעבר התאמה. שלושת החוטים הם באורך של כ-5 ס"מ כל אחד והם מהודקים לפיני המגע. האלקטרודה הביפולרית המוכנה (מימין, לבנה) פושטה מהפיתול שלה, יושרה מחדש ועוצבה לצורת V (מרווח של 5 מ"מ). הסיכוך הוסר מקצותיהם של שני הפינים. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
4. פרוצדורה לניתוח עפעפיים (יום 90 לאחר הלידה)
- הכנת חומרים (ראה סעיף חומרים למידע מפורט על האספקה), בעלי חיים, ואזורים כירורגיים ולא כירורגיים:
- סטריליזציה באוטוקלאב של מכשירים ואספקה כירורגית - המספר בסוגריים ( ) מציין את הכמות המשוערת הדרושה לכל חולדה בוגרת או עבור מדידה: מכשירים כירורגיים (סט אחד ל-4 חולדות, כפי שאושר על ידי ה-ECU IACUC), רפידות גזה (3-4), מקלוני צמר גפן (5-6), עטיפה בגודל 20 x 20 (4 לכל סשן ניתוח), כור חרסינה (1), מיקרו-ספטולה מפלדת אל-חלד (1), תמיסת סליין 0.9% (בקבוק שטיפה אחד), צלחת פטרי (1), וברגים מפלדת אל-חלד 0-80 (3 לחולדה).
- אספקה סטרילית נוספת דרושה: להב ניתוחי גודל 10 (1 ל-4 חולדות), סדין כירורגי (1 לחולדה), פומדת עינית וטרינרית, פובידון-יודין (בקבוק שטיפה אחד), מחט היפודרמית 26G x 3/8" (2), מלחציים לפינים מצופים בניקל עם מקדח #5, מברג שעונים בעל ראש שטוח מצופה בניקל (להב 1.8-2 ממ').
- הכן אזור השהייה סטרילי לכל כלי האספקה והמכשירים הכירורגיים באמצעות חומר חיטוי מאושר בדרגה מחקרית/רפואית. הנח את החומרים בשטח זה כאשר האזור יהיה מוכן.
- הכן מרחב כירורגי סטרילי באמצעות חומר חיטוי מאושר בדרגה מחקרית/רפואית. מרחב זה כולל משטח חימום מים בוויסות תרמי, מכשיר סטריאוטקסי המצויד במסכת הרדמה לחולדה, סטריליזטור חרוזי זכוכית, ומאייד גז איזופלורן (להרדמה). למאייד יש צינורות למסכת ההרדמה ולתא השראה הממוקם במרחב נפרד להליכי הכנת בעלי חיים שאינם סטריליים; כל צינור נשלט על ידי שסתום משלו.
- רחץ ידיים וזרועות ביסודיות עם סבון אנטימיקרוביאלי. ללא מגע עם החלק הפנימי, פתח מראש פריטים שנארזו בשקיות או עטיפות סטריליזציה. לבש כפפות סטריליות תוך שימוש בפרוצדורה אספטית והעבר את כל הפריטים הרלוונטיים לאזור הכירורגי. הגדר את מקדח הברגים לעומק המתאים במלחציים (~ 2 ממ') והכן את המברג. כסה את החומרים הסטריליים בעטיפה סטרילית עד לתחילת הניתוח.
- הכן מרחב שאינו סטרילי עם מאזניים, מכשיר גילוח פרוות חשמלי, מזרקים סטריליים של 1 מ"ל עם מחטים 26G x 3/8 in (1 לחולדה), יומן ניתוחים, ובופרנורפין (ריכוז 0.03 mg/mL) המנתח במינון של 0.1 מ"ל ל-100 גרם.
אזהרה: בופרנורפין הוא אופיואיד סינתטי חלקי מקטגוריה III של ה-DEA, ויש לנעול אותו ולתעד את השימוש בו כראוי. - בדוק את רמת הגז במאייד האיזופלורן; הוסף גז אם הרמה נמוכה. השאר את כפתורי זרימת הגז והתערובת כבויים כעת. הפעל את מיכל ה-O2 ובדוק שיה מספיק גז לכל הניתוחים.
- שקול כל חולדה ורשום את משקל גופה ביומן הניתוחים. השתמש בטבלת הזרקת בופרנורפין כדי לקבוע את נפח ההזרקה המתאים.
- פתח את שסתום המאייד לתא ההשראה והשאר את השסתום למסכת הניתוח כבוי. הגדר את התערובת ל-3 ואת קצב הזרימה ל-3 (3% איזופלורן עם 10% O2 כגז נשא בנפח של 3 L/min).
- הנח חולדה בתא ההשראה ואפשר לה להגיע למישור הרדמה מתאים (נשימה איטית, היעדר רפלקס כף רגל, היעדר רפלקס מצמוץ). הוצא את החולדה מהתא ברגע שהגיעה למישור ההרדמה.
- גלה את ראשה באמצעות מכשיר גילוח הפרווה, תוך חשיפת כמות מספיקה של עור עבור אתר החתך ועפעף שמאל. במידת הצורך, החזר אותה לתא ההשראה כדי להגיע שוב למישור ההרדמה לפני המשך הגילוח.
- חטא את העור החשוף על ידי שפשוף לסירוגין של אלכוהול איזופרופיל ופובידון-יודין שלוש פעמים. במידת הצורך, החזר אותה לתא ההשראה כדי להגיע שוב למישור ההרדמה, לפני ההעברה לשולחן הניתוח.
- ניתוח
- פתח את שסתום המאייד למסכת ההרדמה וסגור את השסתום לתא ההשראה. התאם את התערובת ל-2.5 ואת קצב הזרימה ל-2 (2.5% איזופלורן עם 10% O2 כגז נשא בנפח של 2 L/min). העבר את החולדה למכשיר הסטריאוטקסי ופעל לפי הפרוצדורות הסטנדרטיות לקיבוע ראשה לסורג החותש ולסורגי האוזניים (ראה Geiger et al., 20849 לדוגמה).
- תן לחולדה הזרקה טרום-ניתוחית של בופרנורפין (SC) והשלך בזהירות את המחט (ללא כיסוי) למכל פסולת חדה. הנח סדין כירורגי סטרילי על החולדה, תוך חשיפה של אזור הניתוח בלבד ובידודו משאר הגוף.
- לבש מסכת כירורגית, כובע כירורגי, חלוק כירורגי, משקפי מגן וכל ציוד מגן אישי אחר הנדרש על ידי ה-IACUC. רחץ ושפשף ידיים וזרועות ביסודיות עם סבון אנטימיקרוביאלי. לבש כפפות סטריליות תוך שימוש בפרוצדורה סטרילית.
- מרח כמות קטנה של פומדת עינית בשתי העיניים בעזרת מקלוני צמר גפן כדי למנוע מהן להתייבש.
- המשך בניתוח כאשר החולדה מראה מישור הרדמה מתאים. נטר את החולדה באופן רציף לאורך כל הניתוח ובדוק את רמת האיזופלורן מדי פעם. התאם את כפתורי הזרימה והתערובת בהתאם במהלך הניתוח, בהתבס על תגובת החולדה להרדמה.
- בצע חתך קדמי-אחורי במרכז הגולגולת בעזרת להב סקלפל. חתך זה צריך לחשוף שטח מספיק לפני העיניים (כלומר, חשיפת העצם המצחית) ומעט מאחורי התפר הלמבדואידי.
- גרד את הפריוסטום (מעטפת העצם) בחלק העליון של הגולגולת בזהירות כדי לא לגרום לדימום מוגבר. נגב רקמת חיבור ודם עודפים בעזרת מקל צמר גפן.
- קדח חור באמצעות המקדח בעזרת מלחציים לפינים, החל ישירות מאחורי התפר הקורונלי באחת העצמות הפריאטליות. הסר דם ושאריות עצם בעזרת מקל צמר גפן. תפוס בורג 0-80 בהברגתו באמצעות פינצטה לדלילים והדק אותו לחור בעזרת מברג השעונים; הדק את הבורג רק עד כדי כך שלא ייגרם נזק לרקמת המוח הקורטקלית (בדרך כלל 3-4 סיבובים מלאים).
- פעל לפי אותם נהלים המתוארים בסעיף 4.2.8 כדי להדק שני ברגי 0-80 נוספים לגולגולת, אחד ישירות מאחורי התפר הקורונלי של העצם הפריאטלית הנגדית ואחד ישירות קדמית לתפר הלמבדואידי הימני. נמצא כי 3 ברגים מספיקים לעיגון מלט השיניים (ראה 4.2.18) לגולגולת, שכן בורג רביעי (קדמית לתפר הלמבדואידי השמאלי) יעכב את הצבת האלקטרודה הביפולרית.
- הוצא ראש-במה (headstage) של EMG מצלחת הפטרי. פנה את ראש-הבמה כך שחוט ה-10T יהיה בצדה הימני של החולדה. כופף את חוט ה-10T כלפי מעלה, כך שיהיה מקבילי לקצה התחתון של המיקרו-סטריפ. כופף אותו מעט לצד ימין כדי שהחוט יוכל לעבור מסביב לברגי ה-0-80 הקדמיים והאחוריים. הנח אותו בצד אך במרחק נגיעה.
- [בהנחה שהמנתח הוא ימני] הנח פינצטה ללבישה (dressing forceps) בגודל 3 באישמאלי ובפינצטה ללבישה בגודל 4 בימנית. תפוס את העור העליון באתר החתך של עין שמאל עם הפינצטה בגודל 4 והכוון את הפינצטה בגודל 3 לעבר פינת העין; תפוס את העור בפינה זו. שמור על האחיזה עם הפינצטה בגודל 3 תוך שחרור הפינצטה בגודל 4.
- קח מחט אחת בגודל 26G x 3/8 in והחדר אותה דרך פינת העפעף; סובב את המחט כך שהצד השחוף (beveled) פונה כלפי מעלה. השתמש בפינצטת מיקרו-דיסקציה עם פלטפורמה כדי להחדיר את חוט ה-3T האמצעי לתוך חור המחט. דחף אותו דרך החור סנטימטרים ספורים מבלי להחדירו לגמרי; חוט זה הוא המוליך השלי.
- בצע את הפרוצדורות המתוארות בסעיפים 4.2.1 ו-4.2.12 כדי להחדיר את חוט ה-3T החיצוני לחלק האמצעי של העפעף; חוט זה הוא המוליך החיובי.
- תפוס את שתי המחטים ביד אחת ותפוס את ראש-הבמה ביד השנייה (או באמצעות פינצטה). משוך את המחטים הרחק מהעפעף תוך הובלת ראש-הבמה באותו כיוון בתנועה אחת רציפה. במידת הצורך, סובב את ראש-הבמה כך שחוט ה-10T יהיה לכיוון העין הימנית של בעל החיים; אל תאפשר לחוטי ה-3T להיחצות. השתמש בפינצטה בעלת חוד דק כדי לוודא שוב שהמוליך החיובי נמצא במרכז העפעף.
- כוון את ראש-הבמה כך שתהיה ממורכזת בין העיניים ובמיקום אופטימלי מעל העצם המצחית, קדמית לברגים שהוחדרו דו-צדדית. החזק את ראש-הבמה ביד אחת והחזק את הפינצטה ללבישה בגודל 3 ביד השנייה. כריך את חוט ה-10T סביב בורג אחד או שניים בצד של ה-10T.
- הנח פינצטה ללבישה בגודל 3 ביד אחת ופינצטה ללבישה בגודל 4 ביד השנייה. השתמש בפינצטה בגודל 3 כדי לתפוס את העור באתר החתך לכיוון הרקה השמאלית. השתמש בפינצטה בגודל 4 כדי ליצור "כיס" קטן על ידי הפרדת העור (כלומר, הפסציה השטחית) משריר הטמפורליס. השתמש במספרי איריס כדי לגזור רקמת חיבור נוספת, תוך עבודה לכיוון פינת עין שמאל, כדי להגדיל את גודלו של כיס זה. היזהר לא להיכנס עמוק מדי או לחתוך כלי דם.
- קח אלקטרודה ביפולרית ועצב את חוטים המוליכים כך שיתאימו לקימור של שריר הטמפורליס, בעוד ששני הפינים (הגבי והבטני) ממוקמים מאחורי עין שמאל (ראה וידאו), והקצה התחתון של האלקטרודה הביפולרית יכול להיות ממוקם ישירות מעל הגולגולת. השאר מרחק מספיק בין ראש-הבמה לאלקטרודה זו כדי שתושבי כבלי הקומטטור (איור 3) יוכלו להתחבר ללא הפרעה.
- שפוך אבקת מלט שיניים לכור - התחל עם כ-1/3 מהכור, ולאחר מכן התאם את הכמות לפי הצורך. הוסף את הרכיב הנוזלי עד שהעקביות תהיה מימית, וערבב רכיבים אלו עם הספטולה. כאשר עקביות המלט הופכת צמיגית יותר, מרח אותו על אתר החתך - תוך כיסוי כל קצוות העור בשוליים של לפחות 1/8 אינץ'.
- מרח מספיק מלט כדי לחזק את ראש-הבמה ואת האלקטרודה הביפולרית מבלי למנוע מהחולדה לסגור את שתי עיניה.
- ודא שלפחות 4-5 הברגות של האלקטרודה הביפולרית נשארות ללא כיסוי במלט, כדי שניתן יהיה להבריג את התקע הביפולרי (איור 3). הסר מלט עודף מראש-הבמה - החלק העליון של המיקרו-סטריפ ושלושת פיני המגע חייבים להיות נקיים. המלט מתקשה במהירות ועשוי למנוע בקלות חיבור מלא של כל אחת מהאלקטרודות הללו לתשבי כבלי הקומטטור. השתמש בפינצטה לדלילים כדי להסיר מלט עודף שהתייבש חלקית.
- המתן עד שהמלט יתקשה; הוא יהפוך לשקוף. השתמש במספרי מיקרו-דיסקציה כדי לגזור אורך עודף משני חוטי ה-3T, תוך השארת מספר סנטימטרים של מרחב עבודה.
- תפוס את פינצטת המיקרו-דיסקציה עם הפלטפורמה ביד שמאל ותפוס את פינצטת המיקרו-דיסקציה בעלת החודים הדקים ביד ימין. תפוס חוט 3T אחד עם הפינצטה השמאלית מעט לפני העפעף. באמצעות הפינצטה הימנית, דחף את העפעף למעלה כדי לחשוף יותר מחוט ה-3T והחזק אותו שם. שחרר את הפינצטה השמאלית והשתמש ביד שמאל כדי לתפוס את ראש-הבמה (ודא שהוא מקובע כעת). השתמש בפינצטה הימנית כדי לקלף חלק מהבידוד ה-PTFE, המאפשר לחוט ליצור מגע עם שריר ה-orbicularis oculi.
הערה: היזהר לא למשוך חזק מדי בחוט 3T, שכן הוא עלול להינתק מפין המגע. אם חוט מתנתק, לא ניתן יהיה להחליף את פין המגע כיוון שהמלט שהתקשה לא ישתחרר בחופשיות מהגולגולת מבלי לגרום לשבירת העצם. - בצע את השלבים בסעיף 4.2.21 כדי לקלף PTFE עודף מחוט ה-3T השני.
- תפוס את שתי פינצטות המיקרו-דיסקציה כפי שצוין בסעיף 4.2.21 (עם פלטפורמה בשמאל, חודים דקים בימין). מקם את הפינצטה השמאלית מעט לפני חוט 3T אחד תוך השארת מקום לפינצטה הימנית שתמוקם ישירות מול העפעף. תפוס את החוט עם שתי הפינצטות.
- צור "וו" על ידי השארת הפינצטה הימנית ללא תנועה וסיבוב הפינצטה השמאלית למעלה ומסביב לכיוון העפעף; עשה זאת בתנועה אחת. שחרר בזהירות את הפינצטה הימנית, ולאחר מכן את השמאלית.
הערה: קיבוע האלקטרודות על העפעפיים מסייע לצמצם את האפשרות שהן יששפשפו את הקרנייה. הדבר גם מצמצם את האפשרות לשבירת חוטים בכל שלב שלב הבדיקה ההתנהגותית. בעוד שהקיבוע אינו מונע לחלוטין את שפשוף החוט בקרנייה בכל בעלי החיים, הם בדרך כלל אינם מראים סימנים לנזק עיני, כפי שמשתקף באמפליטודות המצמוץ הגבוהות שלהם (שנמדדו על ידי האוסצילוסקופ הדיגיטלי בסעיף 5.1.7) ומתצפיות בריאות יומיות לאחר הניתוח (דמעתיות מוגברת, סגירה חלקית של העפעף, היעדר ניידות עקב נזק עיני). אם חולדה מראה סימנים ראשוניים של אי-נוחות, היא מורדמת באיזופלורן (ראה 4.1.10) והאלקטרודות שלה נבדקות ו/או ממוקמות מחדש. פומדת עינית נמרחת כדי למנוע מהקרנייה להתייבש. החולדה נבדקת מדי יום להערכת סיבוכים עיניים לאחר הפרוצדורה, ובמידה והם נמשכים, יש לפנות לטיפול וטרינרי. חולדות המראות סיבוכים עיניים חמורים שאינם ניתנים לתיקון באמצעות מיקום מחדש של האלקטרודות או טיפול וטרינרי, מושמדות באופן הומני בהתאם לנהלי העבודה הסטנדרטיים של ה-ECU IACUC.
- צור "וו" על ידי השארת הפינצטה הימנית ללא תנועה וסיבוב הפינצטה השמאלית למעלה ומסביב לכיוון העפעף; עשה זאת בתנועה אחת. שחרר בזהירות את הפינצטה הימנית, ולאחר מכן את השמאלית.
- בצע את השלבים בסעיף 4.2.23 עבור חוט ה-3T השני. גזור חוט עודף באמצעות מספרי המיקרו-דיסקציה.
- השתמש ביד אחת כדי לשחרר את החולדה מסורגי האוזניים תוך תמיכה בגופה ביד השנייה. בדוק את ראשה לאיתור דם או שאריות, נקה במידת הצורך, ותן לה הזרקה פוסט-אופרטיבית של בופרנורפין.
- הנח את החולדה במיכל התאוששות בעל מקור חום (כגון משטח חימום מים בוויסות תרמי) כדי לסייע בהתאוששות. רשום את זמן סיום הניתוח ביומן הניתוחים וכל הערה רלוונטית על החולדה במהלך הניתוח. נטר את נשימת החולדה, וכאשר היא מראה שכיבה על הבטן (sternal recumbency) או נעה, ניתן להחזירה לכלוב מגוריה.
- סטריליז כל שנית את המכשירים (למעט פינצטות מיקרו-דיסקציה - שכן הן עלולות להינזק) באמצעות הסטריליזטור החרוזי, וודא שהאזור הכירורגי נשאר אספטי, וחזור על הפרוצדורות האספטיות אם יבוצעו מספר ניתוחי עפעפיים.
5. פרוצדורה להתניה קלאסית של מצמוץ עיניים
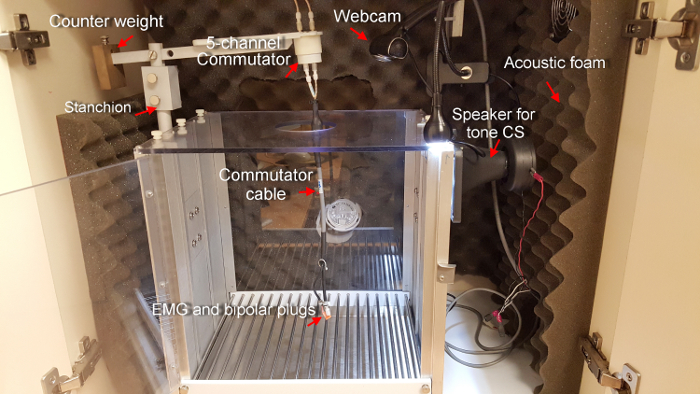
איור 3תיבת התניית אופרנטית משופרת עבור התניית ממצמץ. חולדות הן יונקים הנעים בחופשיות, ולכן נעשה שימוש במחליף (commutator) מסתובב לשמירה על מגע של אות חשמלי מה-EMG ומתשעי בי-פולריים המחוברים לראש. המחליף מחובר לזרוע של המעמד (stanchion), שמוצמד לו משקל מאזן כדי להפחית את הלחץ המופעל על החולדה. ציויץ פיאזו (רמקול) משמיע צליל בתדר של 2.8 kHz ובעוצמה של 85 dB, וערכים אלו מכויילים באופן קבוע. ספוג אקוסטי מסייע בהנחתה של רעשים סביבתיים. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
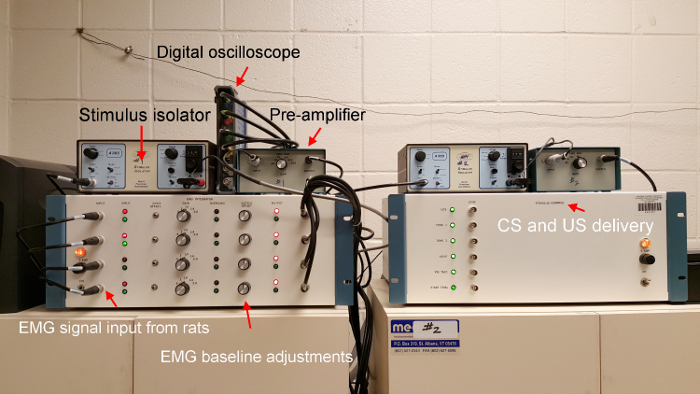
איור 4מערכת התניית מצמוץ עין. מערכת זו, שנבנתה בהתאמה אישית, מורכבת מיחידת אינטגרטור EMG המסננת ומגבירה אותות נכנסים מהחולדות, יחידת בקרת גירויים המספקת גירויים שונים בנוסף לצלילים והלמים, קדם-מגבר עבור כל תיבה אופרנטית להגברת אות ה-EMG, ומבודד גירויים עבור כל תיבה אופרנטית; המערכת מספקת רמות הלם משתנות (ב-mA). אוסצילוסקופ דיגיטלי (שאינו חלק ממערכת ממצנע העין הסטנדרטית) משמש למטרות אבחון במהלך שלבי ההתרגלות והרכישה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
- התחילו את אימון ההרגלה (habituation) והרכישה 5 ימים לאחר הניתוח. הקצו לכל חולדה יום אחד של טיפול והרגלה למערך האימון - המורכב מתיבת התניה אופרנטית משופרת הממוקמת בתוך תא גדול יותר בעל בידוד אקוסטי (איור 3) - ולאחריו 6 ימים של אימון רכישה. בצעו את מפגשי ההסתגלות והרכישה באמצעות מערכת ממצמץ עיניים (eyeblink system) שנבנתה בהתאמה אישית (איור 4).
- צרו קובץ יומן אימונים והדפיסו אותו לצורך רישום יומי. ביומן זה יש להקצות את קבוצת החולדות לתיבות האימונים שלהן באופן פסאודו-אקראי (או בכל שיטת התקריות אחרת).
- הפעילו את מערכת ה-eyeblink, את המחשב והריצו את תוכנת ה-eyeblink. גרסה זו של התוכנה כוללת מודולים (או יישומים) שונים הפועלים באופן עצמאי. הריצו את מודול החיות (Animal module) כדי ליצור קובץ מסוג *.RAT המכיל מידע על הנבדקים (מספר סשן, מזהה חיה, מין, משקל ומספר תיבה). קובץ RAT בודד מנהל עד ארבע חולדות, המהוות צוות (squad) של נבדקים. הזינו את הערכים בהתאם ושמרו את הקובץ. צרו קובץ RAT נפרד עבור כל צוות חולדות המיועד לאימון.
- העבירו את החולדות מהוויביריום (vivarium) לחדר הבדיקה וסגרו את הדלת. טפלו בכל חולדה במשך 5 דקות.
- העבירו חולדה לקופסה המיועדת לה והחבירו את תקעי ה-EMG והתקעים הביפולריים מכבל הקומוטטור (commutator cable) למגבר הראש (headstage) של ה-EMG ולאלקטרודה הביפולרית התואמת שעל ראשה.
הערה: במפגש הראשון עם כבל הקומוטטור, החולדה עשויה להתנגד ולהראות סימני סטרס. יש לטפל בחולדה בזהירות ולאפשר הפסקות בין ניסיונות חיבור שאינם מצליחים כדי להפחית את רמת הסטרס שלה. - השתמשו במחלף (commutator) מסתובב 360° תוך שמירה על העברת וקבלה של אותות חשמליים בזמן שהחולדה נעה בחופשיות בתוך קופסה. הוא כולל 5 ערוצים (3 עבור אלקטרודות ה-EMG, 2 עבור האלקטרודות הביפולריות) המובילים ליחידת ה-EMG Integrator, המסננת ומגבירה את האות הגולמי.
- ודאו כי החולדה נעה בחופשיות וכי היא אינה מוגבלת על ידי משקל מכלול כבלי הקומוטטור או זרוע המעמד. במידת הצורך, כווןו את משקל הנגד בחלקו האחורי של המעמד. ודאו שכל התקעים מהודקים, ולאחר מכן סגרו את דלת הכלוב. בצעו את אותו הליך חיבור ובדיקה עבור כל החולדות.
- השתמשו באוסצילוסקופ כדי לבחון את פעילות ה-EMG שלהם לאיתור סימנים חריגים (למשל, פעילות חשמלית בתדר גבוה ו/או באמפליטודה גבוהה) ובמערכת מעקב בווידאו לבדיקת מצבם (למשל, פעילות מוטורית, רגישות לסביבה, סימני כאב), אם קיימת כזו. רשמו כל בעיה שנצפתה ביומן האימון.
- אפשרו לחולדות להתרגל לתאים שלהן במשך 10 דקות, ולאחר מכן החזירו אותן לכלוביהן הביתיים.
- נקו וחטאו את תיבות התניה האופרנטית, טאטאו את הרצפה ונקו את השולחן/שולחנות. בצעו הליכים אלה לאחר כל סשן.
- אימון הרכישה מתבצע לאורך 6 ימים (מפגשים) רצופים.
- יום 1: העבירו חולדה לקופסה הייעודית לה וחברו את תקעי ה-EMG והתקעים הביפולריים מכבל הקומוטטור (commutator cable) לראש המגבר (headstage) של ה-EMG ולאלקטרודה הביפולרית התואמת על ראשה. בצעו את אותם ההליכים המפורטים בסעיפים 5.1.6 ו-5.1.7.
- הפעילו את מבודדי הגירוי והגדירו את הזרם שיימסר ל-0.4 mA (4% מ-10 mA כפי שמוצג בסרטון). המבודדים מוליכים זרם חשמלי באופן{(-חלופין (כלומר, מניסוי לניסוי), בין הפינים הגביים (dorsal) והבטניים (ventral) של האלקטרודה הביפולרית. פעולה זו מסייעת בהפחתת עייפות של סיבי השריר (בכל אתר שריר) במהלך הגשמות גירוי חוזרות.
- יש לעקוב אחר כל תגובות ממצמץ העין המופעלות ואחר הסבוליות המוצגת בכל ניסוי עבור כל החולדות. אחרי כל ניסוי שני, הגבירו את עוצמת הגירוי הבלתי מותנה (US) של השוק ב-0.4 mA עבור כל חולדה, עד להגעה ל-1.6 mA (בניסויים 7 ו-8). ודאו שוב שכל החולדות מגיבות באופן תקין בתוך הכלובים שלהן, שכל הגדרות ההגברה וההגבר (gain) קבועות, ושהאותות החשמליים המתקבלים מהן תקינים (כלומר, רעש EMG נמוך/מינימלי). השתמשו בעוצמת גירוי בלתי מותנה (US) של 1.6 mA לכל ימי אימון הרכישה.
הערה: אם חולדה מגלה סימני כאב ברמת הלם מסוימת (למשל, קפיצה גבוהה מהרצפה, טיפוס על הקירות, ריצה מסביב), הניסוי יופסק והיא תחזור להגדרת ה-mA הקודמת (0.4 mA פחות) למשך שני ניסיונות. לאחר מכן, החולדה תקבל שוב את ערך ההלם הגבוה שלא סבלה ממנו, ואם תגלה סובלנות, היא תקבל ערכים עולים עד להגעה ל-1.6 mA. אם היא אינה מסוגלת לסבול אף ערך, ייעשה שימוש בערך הנמוך הבא (במרווחים של 0.4) שבו היא מגלה סובלנות לאורך כל האימון. - השתמש באוסצילוסקופ כדי לצפות בפעילות ה-EMG שלהם לאיתור אותות חריגים (לדוגמה:, פעילות חשמלית בתדר גבוה ו/או באמפליטודה גבוהה) ומערכת מעקב בווידאו לבדיקת מצבם (למשל, פעילות מוטורית, רגישות לסביבה, סימני כאב).
הערה: הסבר על Trace ECC: תקופה מייצגת של ניסוי עם צורות גל EMG שתועדו מוצגת ב- איור 1 והפרוצדורה של ECC עקבה מוסברת בפירוט בסרטון. קובץ האימון להתניית עקבה מוגדר למסירת 100 ניסיונות (90 ניסיונות של CS-US מצומדים ו-10 ניסיונות של CS בלבד בכל 10th ניסוי) עם מרווח ממוצע בין ניסויים של 30 שניות. כל מפגש האימון נמשך כ-52 דקות (בהנחה שלא היו הפסקות). כל החולדות הן נאיביות במפגש 1, ויפתחו עקומות למידה דיפרנציאליות (כפי שייקבע על פי ביטויי תגובות מותנית - CRs) ככל שיתקדמו דרך מספר ימי אימון. - התחלת האימון: הפעילו את מודול התוכנה Blink. כאשר תתבקשו לכך, בחרו את קובץ ה-RAT המתאים ואת קובץ האימון עבור התניית מצמוץ עיניים מסוג "trace".
- רשמו את שעת ההתחלה ואת שם הנסיין ביומן האימון. עקבו אחר כל הפעילות בנקודה זו: אותות EMG תקינים, תגובות מצמוץ תקינות לגירוי החשמלי (כלומר, תגובות לא מותנות [URs] גבוהות/תכופות), מצב בריאותן של בעלי החיים ותקינות תפקוד החומרה. רשמו כל הערה ראויה לציון ביומן האימון.
- איסוף הנתונים מבוצע באופן אוטומטי על ידי התוכנה כקבצי RAW (קובץ אחד לכל חולדה, לכל יום). קבצי ה-RAW מכילים אמפליטודת EMG (בוולטים), ספירות תדר, זמן השהיה (latency) ונתוני שטח עבור תגובות בהלה (SRs), תגובות לא מותנות (URs) ותגובות מותנות (CRs; כוללות ואדפטיביות). ארטיפקט של השוק מסתיר את 10 המילי-שניות הראשונות של תקופת ה-UR, ולכן רק 140 המילי-שניות האחרונות של תקופת ה-UR מכילות נתוני UR.
- בסיום האימון, התוכנה תיסגר באופן אוטומטי. הוציאו את כל החולדות מקופסאות האימון והחזירו אותן לביבריום.
- חזרו על שלבים 5.2.5 - 5.2.6 עבור כל ימי האימון הבאים. לפני הפעלת מודול ה-Blink ביום נתון, עדכנו את מספר הסשן (Session number) בתוך קובץ ה-RAT. פעולה זו מאפשרת יצירת קובצי RAW חדשים עבור כל החולדות באותו יום. לכל חולדה צריכים להיות 6 קובצי RAW, בהנחה ששום חולדה לא הוסרה מהאימון.
- עבדו את קובצי ה-RAW וצרו קובץ שעבר סינון לצורך ניתוח סטטיסטי.
- הפעילו את מודול הניתוח (Analysis). בחנו כל סשן עבור כל חולדה באופן פרטני לכל ניסוי (trial-by-trial) כדי לזהות ניסויים בעייתיים. פעולה זו מבוצעת כדי לסנן ניסויים שעלולים להיות פגומים מסיבות שונות (למשל, פעילות בסיסית מוגברת לפני ה-CS, תנועה מוגברת, ניתוק אלקטרודה, בעיות בכבלים/חוטים). בתוכנה קיימים אלגוריתמים המסייעים לנשסה בזיהוי והסרה של "ניסויים פגומים" (bad trials) מתוך קבוצת הנתונים המסוננת.
- ייבאו את הנתונים המסוננים לתוכנה לגיליונות אלקטרוניים ובצעו את הניתוחים הסטטיסטיים הרלוונטיים.
תוצאות
התוכנה eyeblink היא מסוגל לספק ערכה גדול ומקיף של נתונים עבור סוגים רבים של מדידות. לשם קיצור, אנחנו מדווחים במחקר זה, נציג תוצאות עבור למידה וביצועים אמצעים הכוללים אחוז CR מסתגלת, משרעת CR מסתגלת, אחוז UR UR משרעת. תקופת הסתגלות CR נבחר מאחר והוא מייצג את רכישת eyeblink מתוזמנת היטב תגובות על אימונים חוזרים ונשנים, כתוצאה משופרים הפלסטיות הסינפטית בהיפוקמפוס במהלך מעקב ECC50,51,52. האמצעים UR נבחרו כדי להבהיר אם לגירעונות למידה בהשפעת אלכוהול neonatal מעקב ECC היו עקב שיבושים בתפקוד associative learning או שיבושים כתגובה לאסונות ההלם אותנו - אשר עשוי להצביע על ההבדלים מוטיבציה או מוטוריים, יותר מאשר למידה הבדלים בין קבוצות הטיפול. נתונים עבור כל מדד נותחו באמצעות 2 (מיני) x 3 (ילודים ופגם הקבוצה) x 6 (הפעלה) מעורב ANOVAs, עם הפעלת כגורם אמצעים חוזר על עצמו. תופעות משמעותיות העיקרי לטיפול neonatal נותחו באמצעות בדיקות לאחר הוק של Tukey, אינטראקציות משמעותיות נותחו באמצעות בדיקות אפקטים פשוטים. כל ניתוחים סטטיסטיים נערכו באמצעות רמת אלפא מינימלית של 0.05, התוצאות בגרפים ב- SEM. זאת אומרת ±
החל מהמדד אחוז CR אדפטיבית, מקרה ANOVA ציינו השפעה רבה הראשי של קבוצת neonatal, F(2,21) = 11.69, p < 0.001, אבל אין השפעה משמעותית הראשי של סקס (p = 0.71) או אינטראקציה משמעותית בין גורמים אלה (p = 0.20). כצפוי, אחוז CR מסתגלת גדל במהלך המפגשים שישה אימונים, F(5, 105) = 81.15, p < 0.001, ואת ההבדלים בין קבוצות neonatal היו תלויים רמה מסוימת של הפעלה, F(10, 105) = 4.58, p < 0.001. היו אין אינטראקציות משמעותיים אחרים המערבים את הפקטור בהפעלה. באופן דומה משרעת CR אדפטיבית, היה שוב השפעה רבה הראשי של קבוצת neonatal, F(2,21) = 22.32, p < 0.001, אבל אין השפעה משמעותית הראשי של סקס (p = 0.21) או אינטראקציה משמעותית בין גורמים אלה (p = 0.48). משרעת CR גם גדל באופן משמעותי במהלך המפגשים שישה אימונים, F(5, 105) = 59.27, p < 0.001, ואת ההבדלים בין קבוצות neonatal היו תלויים רמה מסוימת של הפעלה, F(10, 105) = 4.31, p < 0.001. בסך הכל, בשני אמצעים CR הראה הבדלים משמעותיים בין האמצעים קבוצה, אמצעים אלה מופרדים באופן משמעותי-הפעלות שונות של אימון. כדי לוודא אילו קבוצות שונה משמעותית, בדיקות לאחר הוק של Tukey הראו כי העכברים (AI) לצינורות אלכוהול המבוצעת באופן משמעותי יותר גרוע בשני אמצעים CR מאשר unintubated-control (UC) וחולדות לצינורות דמה (SI) (p < 0.01 עבור CR אחוז; p < 0.001 עבור CR משרעת), אשר ולא נבדלים אחד את השני (שלp> 0.05). אפקטים פשוטים בדיקות המבוצעות על הקבוצה ילודים ופגם משמעותי x אינטראקציות הפעלה בשני אמצעים CR, אישר החולדות AI היו ליקויי יותר באופן משמעותי ברכישת CRs שמתחילים בשיעור 2 וממשיכה עד 6 מושב בהשוואה סי והן UC עכברושים (כל pשל < 0.05), אשר ולא נבדלים אחד את השני במשך שש פעמים. החריג היחיד היה משרעת CR מסתגלת כי חולדות סי לא להתחיל דברים שונים באופן משמעותי AI חולדות עד שיעור 3. תוצאות אלו מוצגים באיור 5A, 5B.
היו הבדלים משמעותיים אין האמצעים UR בשל מין, קבוצת neonatal או אינטראקציות של גורמים אלו, יחד עם הגורם הפעלה. ממצאים שליליים אלו עולה כי כל קבוצה הצליח לפלוט eyeblink התגובות ההלם אותנו באותה מידה, כי הגירעונות למידה הנהוגות העכברושים AI לא הושפעו על ידי הבדלים מוטיבציה או מנוע מהבהבת (איור 6A, 6B).
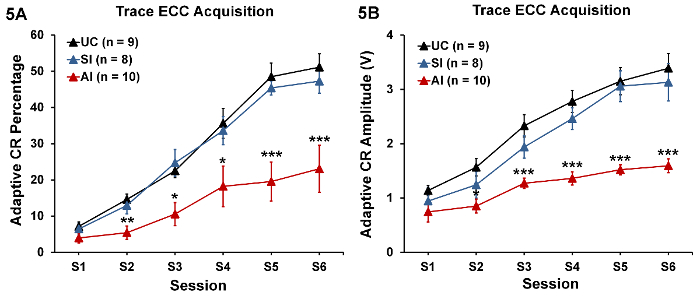
איור 5 : רכישת מעקב ממוזגים מגיבה (זאת אומרת ± SEM). אלכוהול בתחילת החשיפה (קבוצה AI) השפיעה באופן משמעותי רכישת אחוז מותנה מסתגלת התגובה (CR) (א) ו משרעת (B). מעקב ECC קשה מטבעו לרכוש, לכן בצעדים נמוכים יחסית עבור כל קבוצות - עם השהיה ECC, אחוזי עשוי להגיע 80-85% במודלים מכרסמים FASD21,53. בכל זאת, מעקב ECC ההליך הוא יותר מכביד על ההיפוקמפוס, אשר חשופה להשפעות אלכוהול במהלך התפתחות המוח מוקדמת. * = p < 0.05, * * = p < 0.01, * * * = p < 0.001 בין ה-UC ו- AI חולדות; גודל מדגם ניתנים בסוגריים. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
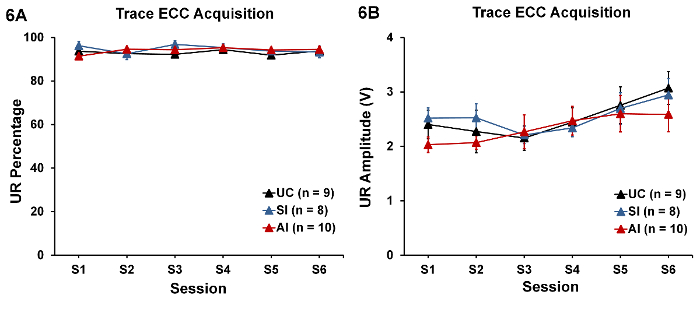
איור 6 : רכישת unconditioned תגובות (אומר ± SEM). Eyeblink ביצועים (אחוז UR UR משרעת) לא היתה שונה באופן משמעותי בקרב קבוצות. העדר הבדלים מציינים כי עוצמת ההלם בשימוש במהלך רכישת ההכשרה לא באופן שונה לשנות מוטיבציה אצל החולדות AI או וביכולתם לייצר הגנתית למצמץ התגובות ההלם, לעומת שתי קבוצות הבקרה (UC ו- SI). גודל מדגם ניתנים בסוגריים. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
דיון
הגורים neonatal עכברים שקיבלו אתיל אלכוהול בימים כמחנכת 4-9 הציג מעקב eyeblink מיזוג ליקויי בבגרות. ממצאים אלה תומכים את הרעיון כי אלכוהול הוא teratogen עם ומתמשך השפעות מזיקות על הפונקציה בהיפוקמפוס. באופן כללי, ממוזגים להגיב בהליך מעקב היה נמוך עבור חולדות נחשפים אלכוהול לעומת חולדות בשתי הקבוצות שליטה. ליקויי associative learning בחולדות החשופים אלכוהול לא הושפעו על ידי הבדלים מוטיבציה או מוטוריים (כלומר., אין הבדל בין מהבהב על עוצמת ההלם בארה ב).
בעוד מעקב ECC היא כלי אבחון שימושי עבור שחקרתי אתגר-induced neuropathology בהיפוקמפוס, התוצאות של שיטה זו יש להציב לתוך בהקשר הנכון. ראשית, מרכיבים פרוצדורלי בהפגנה זו מעורב מסירה יישוב של אלכוהול במהלך חלון הידוע של פגיעות במוח המתפתח, ייצור של חומרה אלקטרודה מאפשר הקלטה של פעילות electromyographic, מספק הלם, למועד ההשתלה של החומרה הנ ל, וכן הניסויים בחיות עוקבות באמצעות פרדיגמה למידה הבודק פונקציה קוגניטיבית של ריבית. בכל שלב בתהליך, יש לנקוט בכדי לא לגרום נזק מיותרים/לא מכוונות הנושאים מכרסמים וכדי לפקח שלטי בריאות באופן קבוע. התוצאות ההתנהגות שלהם לספק את "חלון" קוגניציה, מבנה פסיכולוגי זה רק במדויק תיאר כאשר מצבם הבריאותי לא נפגעת על ידי שגיאות ניסיוני המקיף מינון אלכוהול, ליקויי חומרה או ניתוח ההשתלה. לפיכך, כל רכיב פרוצדורלי בתהליך המחקר חייב ניתן ליישם באופן קול על מנת להבטיח כי יכול להיות אומדן תוצאות ECC לממצאי בבני אדם. שנית, הפרדיגמה ECC מספק תובנה על טיב associative learning, אך חייבים להקפיד לא כדי להרחיב את הממצאים באמצעות גישה זו בהרחבה לייחס אותם בתחומים קוגניטיביים אחרים - זיכרון העבודה, זיכרונות קצרים/לטווח ארוך ותודעה - אלא אם כן אחד שילבה איזה היבט של תחומים אלה במסגרת מחקר ECC על ידי עיצוב ניסיוני. לדוגמה, ההדגמה בחן את שלב הרכישה של מעקב ECC למידה, אך לא לבחון שימור זיכרון בחולדות לאחר הם סיימו את האימונים. זיכרון הוא לפיכך תהליך פסיכולוגי עצמאי צריך להעריכו בנוסף למידה. על ידי עיצוב, אחד עשויים לשלב את מרווח זמן השמירה בזיכרון כדי להעריך את יכולת הזיכרון לטווח קצר או לטווח ארוך גם. שלישית, הכרה כי ישנם מערכות זיכרון מקבילים54 ייתכן עובדים בו זמנית יחד עם גורמי מוטיבציה, חווייתיים, הורמונלי אשר תורמים להתנהגות, חיונית להבנה זו associativity (במהלך ECC), אך אחת של תהליכים רבים לגלות מהו "טוב" או "המסכן" על למידה. לבסוף, מעקב ECC אינה משימה בהיפוקמפוס תלוית גרידא, כמו באזורים אחרים במוח עשויים לתווך רכיבים מסוימים של הכי טובים ביותר. לפיכך, הבנה של האינטראקציות בין מעגלים עצביים שונים ו/או הסוג של גירוי פרמטרים שאינם מנוצלים במחקר, חייב להילקח בחשבון בעת ביצוע השלכות בהתבסס על תוצאות דיסקרטית. המוח הקטן, לדוגמה, תורם גם מעקב ECC, שבו הוא משפיע על מאפיינים טופוגרפיים של CR ו- CR תזמון, במיוחד כאשר המודיעין הפקיסטאני הוא קצר משך. מעקב ECC לא מושפע בבני עם אסטרוציטומה נזק אשר נבדקים עם מרווח זמן מעקב (ms 1000), אלא היא מושפעת אלה המקבלים מרווח (400 ms) מעקב קצר34. יתר על כן, פצעים דו-צדדים של הגבי המדיאלי קליפת המוח הקדם חזיתית (mPFC) המכוון את האזורים agranular anterior cingulate, המדיאלי בעכברים, למנוע רכישת מעקב CRs55, בעוד הרס mPFC סימטרית בארנבים מייצרת תוצאות דומות46. ממצאים אלה גם להדגיש את חשיבות בהתחשב הבדלים בין המינים ב הקדם חזיתית תרומות מוח-אסטרוציטומה גזע מונע associative learning, כגון מעקב ECC. בזמן חשיפה neonatal אלכוהול במהלך 4-9 המינימאליים PD של 500-ms CRs מעקב למבוגר עכברים מחקר זה ואחרים47,56, זה אינו המקרה אותו neonatal החשופים אלכוהול חולדות להיתקל מרווח מעקב 300-ms, גם כאשר אתגר במינון גבוה יחסית של אלכוהול (5 g/kg)57, רומז ירידת ערך מעקב בחולדות חשוף-אלכוהול הוא תלוי המשך מעקב מרווח.
במחקר זה, ההיפוקמפוס הודגש כמו להיות לתדרוך על תיווכה מעקב ECC, וכאשר תיגר על ידי חשיפה אלכוהול neonatal, תערוכות נזקים עצביים הקשורים כפי שהיא משתקפת לקויות ברכישת מעקב CRs. זה בטח הזהיר, עם זאת, כי המעגלים גזע המוח-מוח, בעיקר לגרעין interpositus, חיונית עבור היבטים רבים של ECC, לרבות רכישת, ביטוי, תכונות הטופוגרפי של CR, בהתאם לסוג של פעילות ECC כולל מעקב ECC36,40,55,58,59. אכן, מעגל עצבי זה מקיים אינטראקציה עם ההיפוקמפוס נהיגה הביטוי של CRs במהלך מסדר גבוה צורות של ECC, כגון מעקב ECC60. חשיפה אלכוהול במהלך התפתחות המוח מוקדמת משפיעה במיוחד בהיפוקמפוס פונקציית מעקב ECC אינו ברור לחלוטין. אזורים שונים במוח רבים פגיעים עלבון אלכוהול מוקדם, לרבות mPFC, המוח הקטן, ההיפוקמפוס18,19,23,47,61,62, וזה קרוב לוודאי כי אלכוהול משבש את התפקוד של מבנים אלה בדרגות שונות, משתנה, אך הבדלים חשובים מבחינה תפקודית על פני הליכים ECC רבים. למרות מלכודות לגבי הפרשנות של תוצאות מעקב ECC מחקרים, רכישה מוצלחת של מעקב CRs הוכח לפחות סומכים ההיפוקמפוס ללא פגע, נתמך על ידי חיות הנגע מחקרים42,44,63,64,65. הליך זה ובכך נשאר בגישה בעלי ערך גבוה עבור הממחיש הקישורים בין אלכוהול התפתחותית חשיפה לאתר ממוזגים להגיב כי המעגלים העצביים שבבסיס, זה הרבה יותר מובן מזה של משימות אחרות תלוי בהיפוקמפוס, כגון מקום למידה במבוך המים מוריס, הרומן וראייה, דימוגראפיים ותלויי המעקב פחד מיזוג.
ECC כשיטה התנהגותית כדי "assay" קוגניציה, יש הישימות נרחבת בתחום neuroteratology התפתחותית. אכן, הממצאים האחרונים מהמעבדה שלנו תומך התפישה ההיפוקמפוס המתפתח היא רגישה מאוד תופעות אלכוהול, אשר עשוי להיות חמאני אסטרטגיות שונות התערבותית18,47. היתרון העיקרי כאן הוא עם הבנה טובה יותר של השפעת אלכוהול מעקב ECC למידה גירעונות, שהם עשויים להיות חזוי של בעיות אחרות בפונקציות בהיפוקמפוס מבוסס מחוץ associative learning - במיוחד אלה ידוע בתיווכו neurocircuitry בהיפוקמפוס אותו.
היישום של מעקב ECC שלה גרסאות אחרות (למשל, עיכוב, היפוך, אפליה, מתחם) להבהיר את הנוירוביולוגי מנגנונים ומערכות העצבים המעורבים associative learning, ניתן להרחיב מעבר לשדה המחקר אלכוהול עוברית. לדוגמה, פרדיגמה זו קיבל תשומת לב רבה המקרים האדם, מודלים חייתיים של מחלות פסיכיאטריות כמו סכיזופרניה66,67, מחלות ניווניות כגון מחלת אלצהיימר68,69ותרופות של התעללות-70,-71,-72. היתרונות כשיטת מחקר להעריך תפקוד נוירוקוגניטיבי לקוי ניכרות ובכך על פני תחומים הביו-רפואית ופסיכולוגית רבים, לרבות מדעי המוח.
גילויים
המחברים אין לחשוף.
תודות
עבודה זו נתמכה על ידי מענק כדי TDT מ אלכוהול ומשקאות רפואי מחקר קרן (ABMRF).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| <חזק>חשיפה לאלכוהול בילודים | |||
| 190 אלכוהול אתילי הוכחה (USP) | Pharmco-AAPER | 225-36000 [מחסן רפואי ECU] | ניתן להחליף; צריך להיות USP; הימנע משימוש במיכל/סל אלכוהול אתילי 200 הוכחה |
| לגורים | כל | ||
| שמן תירס | כל | ||
| משאבת טיפול במים מחוממים בדרגת מזון עם/ רפידות | Gaymar | TP-500 | כדי לשמור על חום הגורים; ניתן להחליף |
| מחטים היפודרמיות 22 גרם x 1 אינץ', סטריליות | כל | ||
| מחטים היפודרמיות 30 גרם x 1/2 אינץ', סטריליות | כל | ||
| אלכוהול איזופרופיל 70% | EMD Millipore | PX1840-4 [פישר סיינטיפיק] | ניתן להחליף; מגיב דרגה www.fishersci.com |
| לונג-אוונס חולדות (מגדלים נקבות וזכרים) | מעבדות צ'ארלס ריבר | N/A [המחלקה לרפואה השוואתית] | יש לציין גיל ומשקל; התמחור משתנה לפי גורמים אלה www.criver.com |
| מספריים מיקרו ניתוח, 3.5 אינץ', 23 מ"מ להבים | מכשירי מחקר ביו-רפואיים | 11-2200 | לחיתוך צינורות PE brisurgical.com |
| פוליאתילן 10 צינורות (0.011 אינץ'. תעודת זהות; 0.024 אינץ' O.D.) | BD Diagnostic Systems | 22-204008 [Fisher Scientific] | ניתן להחליף www.fishersci.com |
| פוליאתילן 50 צינורות (0.023 אינץ'. תעודת זהות; 0.038 אינץ' O.D.) | BD Diagnostic Systems | 22270835 [Fisher Scientific] | ניתן להחליף www.fishersci.com |
| מחמם מים מוסדר או מחמם בקבוקי חלב לתינוקות | כל | אופציונלי; מסייע בחימום תמיסות חלב קר | |
| מזרקי טוברקולין, סטרילי, 1.0 מ"ל | כל | ||
| מזרקי טוברקולין, סטרילי, 10 מ"ל | כל | ניתן להשתמש בו כדי להוציא אלכוהול אתילי או להשתמש בסולם שקילה של מיקרופיפט בגודל מתאים | |
| כל אחד | צריך להיות בעל רזולוציה טובה (ביחידות גרם) | ||
| <חזק>שם | <חזק>חברה | <חזק>מספר קטלוגי | <חזק>הערות |
| ><חזק>ייצור במה של EMG ואלקטרודה דו קוטבית אלקטרודה שינוי | |||
| דו קוטבית, 2 ערוצים SS Twisted | Plastics One, Inc. | MS303/2-B/SPC נבחר SS 2C TW .008 " | חייב לציין אורך מותאם אישית של 20 מ"מ מתחת להדום www.plastics1.com |
| Centi-Loc Strip Socket Insulator (המכונה גם Micro Strip Strip Insulator) | ITT Cannon / ITT Interconnect Solutions | CTA4-IS-60* או CTA4-1S-60* | *תלוי בספק; ראה www.onlinecomponents.com או www.avnetexpress.avnet.com |
| צבת שיניים, CMF Medicon | 390.20.05 | ניתן להחליף; השתמש כדי לכווץ חוטים לפיני מגע זכריים www.medicon.de | |
| מספריים לניתוח, 3.5 אינץ', 23 מ"מ | להבים מכשירי מחקר ביו-רפואיים | 11-2200 | השתמש רק לחיתוך חוטי 3T; חיתוך חוטי 10T יפגע בלהב - השתמש במקום זאת בלהב של מסיר החוטים brisurgical.com |
| PTFE, 10T (קוטר חשוף .010 אינץ') | זיגמונד כהן-מדווייר | 316SS10T | www.sigmundcohn.com |
| PTFE-מצופה חוט נירוסטה, 3T (קוטר חשוף 0.003 אינץ') | זיגמונד כהן-מדווייר | 316SS3T | www.sigmundcohn.com |
| סכין גילוח | כל כדי | להסיר 1 מ"מ משיניים של אלקטרודה דו-קוטבית | |
| Relia-Tac שקע מגע פין, זכר | Cooper Interconnect | 220-P02-100 | ראה Allied Electronics Cat # 70144761 www.alliedelec.com |
| פינצטה, דיוק גבוה, משונן, 4 3/4 במדעי | מיקרוסקופיית אלקטרונים | 78314-00D | כדי לתפוס חוט 10T בחוזקה תוך הפשטת PTFE בפינצטה חלקה www.emsdiasum.com |
| פינצטה, דיוק גבוה, חלק, 4 3/4 | במדעי מיקרוסקופיית אלקטרונים | 78313-00B | www.emsdiasum.com |
| פינצטה, טיפים עדינים במיוחד, 4 3/4 | במדעי מיקרוסקופיית אלקטרונים | 78510-0 | כדי להפשיט 1 מ"מ של PTFE מקצה אחד של חוט 3T; אחוז בחלק מוגן עם פינצטה חלקה www.emsdiasum.com |
| מסיר חוטים, 16-26 AWG | כל | השתמש בקצה הלהב כדי לחתוך רצועות מיקרו | |
| <חזקות>שם | <חזקות>חברה | <חזקות>מספר קטלוגי | <חזק>הערות |
| ><חזק>ניתוח עפעפיים | |||
| מכשירים כירורגיים (נירוסטה באיכות גבוהה) | |||
| 2 x מלקחיים חבישה, 4 במכשירי | מחקר ביו-רפואיים | 30-1205 | ניתנים להחלפה; מלקחיים נוספים לאחיזת אלקטרודות/ברגים מחוץ למגש הניתוח brisurgical.com |
| מלקחיים חבישה, 3 במכשירי | מחקר ביו-רפואיים | 30-1200 | ניתן להחליף brisurgical.com |
| מגש מכשירים | מכשירי מחקר ביו-רפואיים | 24-1355 | ניתן להחליף brisurgical.com |
| ידית סכין מס' 3, 5 במכשירי | מחקר ביו-רפואיים | 26-1000 | ניתן להחליף brisurgical.com |
| מיקרו מלקחיים, 3.5 אינץ', נקודות עדינות | מכשירי מחקר ביו-רפואיים | 10-1630 | ניתן להחליף brisurgical.com |
| מיקרו מלקחיים, 3.5 אינץ', פלטפורמה חלקה (0.3 x 5 מ"מ) | מכשירי מחקר ביו-רפואיים | 10-1720 | brisurgical.com |
| מספריים לניתוח, 3.5 אינץ', עדינים במיוחד, 15 מ"מ להבים | מחקר ביו-רפואיים | 11-2000 | ניתנים להחלפה brisurgical.com |
| מלקחיים רסיסים רגילים, 3.5 אינץ' | מכשירי מחקר ביו-רפואיים | 30-1600 | ניתנים להחלפה brisurgical.com |
| #10 להב כירורגי מנירוסטה לידית #3, סטרילי | להחליף | כל | |
| 0-80 x 0.125 בברגי נירוסטה | Plastics One, Inc. | 0-80 x 0.125 | ניתן להחליף www.plastics1.com |
| Alcohol Prep Pads, Sterile | Fisher Scientific | 22-363-750 [ניתן להחליף את Fisher Scientific | www.fishersci.comBetadine |
| Povidone-Iodine | Purdue Frederick Co. | 6761815101 [Fisher Scientific] | ניתן להחליף www.fishersci.com |
| Betadine Povidone-Iodine Prep Pads | Moore Medical | 19-898-946 [Fisher Scientific] | ניתן להחליף www.fishersci.com |
| ספוגיות כותנה, ניתנות לחיטוי | כל | בדרך כלל מקדח באורך 7.6 ס"מ או 15.2 ס"מ | |
| עבור מגן סיכה, #55 (0.052 אינץ') | כל | מתכת צריכה לעמוד בפני חלודה וקורוזיה | |
| רפידות גזה, 2 אינץ' x 2 | בפישר סיינטיפיק | 22-362-178 [פישר סיינטיפיק] | ניתן להחליף www.fishersci.com |
| כפפות לטקס/ניטריל/ויניל לשימוש כללי | כל | ||
| מעקר חרוזי זכוכית | כל | מכשירי עיקור בין ניתוחים | |
| משאבת טיפול במים מחוממים עם רפידות x 2 | Gaymar | TP-500 | מומלץ להשתמש במשאבות נפרדות - 1 לניתוח, 1 להתאוששות |
| מחטים היפודרמיות 26 גרם x 3/8 אינץ', סטריליות | כל | ||
| איזופלורן | Vedco | NDC 50989-150-12 | ניתן להחליף את Manfacturer; ייתכן שיידרש אישור וטרינרי |
| מערכת אידוי איזופלורן, שולחן, | פארקלנד מדעי | V3000PK | ניתן להחליף www.parklandscientific.com |
| Jewelers מברג עם להב 1.8-2 מ"מ | כל | מתכת צריכה לעמוד בפני חלודה וקורוזיה | |
| חבילת BCA אורתו-ג'ט (מלט דנטל) | Lang Dental | B1334 | מכיל אבקה (1 פאונד) ונוזל www.langdental.com |
| מיכל חמצן עם ווסת לחץ, | ספק מקומי | ||
| כור היתוך חרסינה, High-Form, מזוגג, 10 מ"ל | CoorsTek, Inc. | 07-965C [Fisher Scientific] | ניתן להחליף ב-Fisher FB-965-I Wide-Form Crucible www.fishersci.com |
| Puralube משחת עיניים וטרינרית, | חברת הנרי שיין | סטרילית NC0144682 [Fisher Scientific] | ניתן להחליף www.fishersci.com |
| Quatricide PV-15 | PV-15 | תרופתי | ; ניתן להחליף www.pharmacal.com |
| מסכות הרדמה בגז עכברוש לניתוח סטריאוטקסי | חברת סטולטינג | 51610 | www.stoeltingco.com |
| עכברוש מכשיר סטריאוטקסי עם מוטות אוזניים (45 מעלות) | כל | מוטות 45 מעלות מומלצים למניעת נזק לעור התוף | |
| כירורגי רובוז חלב | רובוז NC9358575 כירורגי | [פישר סיינטיפיק] | ניתן להחליף; למכשירי סיכה במהלך חיטוי www.fishersci.com |
| גוזם שיער מכרסמים | כל | ||
| נתרן כלורי | פישר סיינטיפיק | S641-500 [פישר סיינטיפיק] | להכנת 0.9% מי מלח; דרגת ריאגנט; USP www.fishersci.com |
| מיקרו-מרית נירוסטה (להב: 0.75 ליטר x 0.18 אינץ'. W) | פישר סיינטיפיק | 21-401-15 [פישר סיינטיפיק] | ניתן להחלפה www.fishersci.com |
| Starrett Pin Vise, 0.000 אינץ' - 0.055 בכל | ציפוי ניקל או שווה ערך מומלץ לעמוד בפני חלודה וקורוזיה | ||
| כפפות כירורגיות סטריליות | כל | ||
| עטיפות עיקור, 20 אינץ' x 20 אינץ', ניתנות לחיטוי | Propper Manufacturing | 11-890-8C [Fisher Scientific] | שימושי לעטיפת אספקה הניתנת לחיטוי ובשדה סטרילי במהלך הניתוח www.fishersci.com |
| וילון כירורגי, סטרילי/ניתן לחיטוי | כל ייתכן | שיהיה צורך לחתוך לגודל עבור חולדות | |
| חלוק כירורגי * | כל | נדרש על ידי | |
| מסכה כירורגית IACUC | כל | ||
| מזרקי טוברקולין, סטריליים, 1.0 מ"ל | כל | ||
| משקל | כל אחד | צריך להיות בעל רזולוציה טובה (ביחידות גרם) | |
| שם | Catalog Number | Comments | |
| <מערכת ורכיבים >חזקיםמצמוץ (בהנחה של מערכת 4 מכרסמים) | |||
| 5 קומוטטור 5 ערוצים x 4 | פלסטיק One, Inc. | SL2 + 3C | www.plastics1.com |
| כבל אלקטרודה דו קוטבי, כפול 305 x 4 | Plastics One, Inc. | 305-305 80 ס"מ TT2 (C) | מספק קצה תקע לאלקטרודה דו-קוטבית על חולדה ולקומוטטור; יש לשנות www.plastics1.com |
| כבל, 5 ערוצים, מוגן, 26 AWG x 4 | כל כדי | לייצר כבל קומוטטור; זה חייב להיות עשוי מתא שריטות | |
| עבור תיבת בדיקה אופרנטית (בפנים: ניתן להחליף 24 H x 23 W x 14 D in) x 4 | Med-Associates | ; המידות הפנימיות צריכות להתאים לתיבת בדיקה אופרנטית בנוחות, עם מקום לקצף אקוסטי; מתאים למאוורר - 55-60 dB www.med-associates.com | |
| צינורות כיווץ חום (קוטר 3/16 אינץ', 1/4 אינץ', 3/8 אינץ', 1/2 אינץ') | כל | כדי להגן על כבל קומוטטור שונה קצוות מולחמים וחיבורים | |
| מלמין קצף אקוסטי משולש שיא עם Hypalon שחור (24 x 48 אינץ') | McMaster-Carr | 9162T5 | ; חתוך כך שיתאים ל-4 תאי דיור www.mcmaster.com |
| תיבת בדיקה אופרנטית (חיצונית 12.5 L x 10 W x 13.5 אינץ' H), | Med-Associates | ENV-007 | עם רצפת רשת נירוסטה וחלק עליון מותאם אישית (3 בחור במרכז לכבל קומוטטור) www.med-associates.com |
| אוסצילוסקופ (אופציונלי) | כל | מפרט מינימלי מומלץ: רוחב פס אנלוגי של 200 מגה-הרץ, דגימה בזמן אמת של 1 GS/s, 4 ערוצים; ראה www.picotech.com /td> | |
| Piezo Tweeters (רמקולים) x 4 (7 x 3 אינץ') | MCM Electronics | 53-805 | חייב להתאים למפרטי טווח התדרים עבור מערכת מצמוץ (2500 הרץ - 25 קילו-הרץ) www.mcmelectronics.com |
| תחנת הלחמה, הלחמה, שטף, טינר | כל | להלחמת 26 כבלי AWG לשקעי נקבה (המתאימים לפיני מגע זכריים relia-tac) ותקעים דו-קוטביים | |
| מבודדי גירוי x 4 | WPI International | A365 | יחידות אלו פועלות על סוללות אלקליין 16-9V; גרסה נטענת מתאימה (A365R) זמינה www.wpiinc.com |
| כבל אלקטרודה תלת-קוטבי עבור קומוטטור SL3C x 4 | פלסטיק אחד, בע"מ | 335-335 80 ס"מ TT3 C | מספק קצה תקע ל-EMG headstage על חולדה ולקומוטטור; יש לשנות www.plastics1.com |
| נורות LED USB x 4 | כל | נורות מבוססות USB אינן גורמות ל"רעש" חשמלי עם אותות ה-EMG מהחולדות www.plastics1.com | |
| webcams x 4, תוכנת מעקב | כל | ||
| מחשב מחשב המריץ מערכת הפעלה MS Windows | כל |
מקורות
- Jones, K. L., Smith, D. W. Recognition of the fetal alcohol syndrome in early infancy. Lancet. 2, 999-1001 (1973).
- Stratton, K. R., Howe, C. J., Battaglia, F. C. Fetal alcohol syndrome: Diagnosis, epidemiology, prevention, and treatment. , National Academy Press. (1996).
- Streissguth, A. P., Barr, H. M., Martin, D. C., Herman, C. S. Effects of maternal alcohol, nicotine, and caffeine use during pregnancy on infant mental and motor development at eight months. Alcohol Clin Exp Res. 4 (2), 152-164 (1980).
- Streissguth, A. P., O'Malley, K. Neuropsychiatric implications and long-term consequences of fetal alcohol spectrum disorders. Semin Clin Neuropsychiatry. 5 (3), 177-190 (2000).
- May, P. A., et al. Prevalence and epidemiologic characteristics of FASD from various research methods with an emphasis on recent in-school studies. Dev Disabil Res Rev. 15 (3), 176-192 (2009).
- Sowell, E. R., et al. Mapping callosal morphology and cognitive correlates: Effects of heavy prenatal alcohol exposure. Neurology. 57 (2), 235-244 (2001).
- Sowell, E. R., et al. Abnormal development of the cerebellar vermis in children prenatally exposed to alcohol: Size reduction in lobules I-V. Alcohol Clin Exp Res. 20 (1), 31-34 (1996).
- Autti-Ramo, I., et al. MRI findings in children with school problems who had been exposed prenatally to alcohol. Dev Med Child Neurol. 44 (2), 98-106 (2002).
- Hamilton, D. A., Kodituwakku, P., Sutherland, R. J., Savage, D. D. Children with Fetal Alcohol Syndrome are impaired at place learning but not cued-navigation in a virtual Morris water task. Behav Brain Res. 143 (1), 85-94 (2003).
- Uecker, A., Nadel, L. Spatial but not object memory impairments in children with fetal alcohol syndrome. Am J Ment Retard. 103 (1), 12-18 (1998).
- Uecker, A., Nadel, L. Spatial locations gone awry: object and spatial memory deficits in children with fetal alcohol syndrome. Neuropsychologia. 34 (3), 209-223 (1996).
- Goodlett, C. R., Lundahl, K. R. Temporal determinants of neonatal alcohol-induced cerebellar damage and motor performance deficits. Pharmacol Biochem Behav. 55 (4), 531-540 (1996).
- Goodlett, C. R., Kelly, S. J., West, J. R. Early postnatal alcohol exposure that produces high blood alcohol levels impairs development of spatial navigation learning. Psychobiol. 15, 64-74 (1987).
- Bayer, S. A., Altman, J., Russo, R. J., Zhang, X. Timetables of neurogenesis in the human brain based on experimentally determined patterns in the rat. Neurotoxicol. 14 (1), 83-144 (1993).
- Dobbing, J., Sands, J. Quantitative growth and development of human brain. Arch Dis Child. 48 (10), 757-767 (1973).
- West, J. R. Fetal alcohol-induced brain damage and the problem of determining temporal vulnerability: A review. Alcohol Drug Res. 7 (5-6), 423-441 (1987).
- Zecevic, N., Rakic, P. Differentiation of Purkinje cells and their relationship to other components of developing cerebellar cortex in man. J Comp Neurol. 167, 27-48 (1976).
- Rufer, E. S., et al. Adequacy of maternal iron status protects against behavioral, neuroanatomical, and growth deficits in fetal alcohol spectrum disorders. PLoS One. 7 (10), e47499(2012).
- Tran, T. D., Kelly, S. J. Critical periods for ethanol-induced cell loss in the hippocampal formation. Neurotoxicol Teratol. 25 (5), 519-528 (2003).
- Pierce, D. R., Goodlett, C. R., West, J. R. Differential neuronal loss following early postnatal alcohol exposure. Teratology. 40 (2), 113-126 (1989).
- Tran, T. D., Jackson, H. J., Horn, K. H., Goodlett, C. R. Vitamin E does not protect against neonatal ethanol-induced cerebellar damage or deficits in eyeblink classical conditioning in rats. Alcohol Clin Exp Res. 29 (1), 117-129 (2005).
- Goodlett, C. R., Peterson, S. D., Lundahl, K. R., Pearlman, A. D. Binge-like alcohol exposure of neonatal rats via intragastric intubation induces both Purkinje cell loss and cortical astrogliosis. Alcohol Clin Exp Res. 21 (6), 1010-1017 (1997).
- Green, J. T., Tran, T. D., Steinmetz, J. E., Goodlett, C. R. Neonatal ethanol produces cerebellar deep nuclear cell loss and correlated disruption of eyeblink conditioning in adult rats. Brain Res. 956, 302-311 (2002).
- Cronise, K., Marino, M. D., Tran, T. D., Kelly, S. J. Critical periods for the effects of alcohol exposure on learning in rats. Behav Neurosci. 115 (1), 138-145 (2001).
- Tran, T. D., Cronise, K., Marino, M. D., Jenkins, W. J., Kelly, S. J. Critical periods for the effects of alcohol exposure on brain weight, body weight, activity and investigation. Behav Brain Res. 116 (1), 99-110 (2000).
- Steinmetz, J. E. Brain substrates of classical eyeblink conditioning: A highly localized but also distributed system. Behav Brain Res. 110 (1-2), 13-24 (2000).
- Thompson, R. F. The neurobiology of learning and memory. Science. 233 (4767), 941-947 (1986).
- Ivkovich, D., Eckerman, C. O., Krasnegor, N. A., Stanton, M. E. Eyeblink classical conditioning: Vol. 1 Applications in humans. Woodruff-Pak, D. S., Steinmetz, J. E. , Kluwer Academic Publishers. 119-142 (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume I - Applications in humans. , Kluwer Academic Publishers. (2000).
- Woodruff-Pak, D. S., Steinmetz, J. E. Eyeblink classical conditioning: Volume II - Animal models. , Kluwer Academic Publishers. (2000).
- Kishimoto, Y., et al. Implicit Memory in Monkeys: Development of a Delay Eyeblink Conditioning System with Parallel Electromyographic and High-Speed Video Measurements. PLoS One. 10 (6), e0129828(2015).
- Chen, L., Bao, S., Lockard, J. M., Kim, J. K., Thompson, R. F. Impaired classical eyeblink conditioning in cerebellar-lesioned and Purkinje cell degeneration (pcd) mutant mice. J Neurosci. 16 (8), 2829-2838 (1996).
- Freeman, J. H. Jr, Carter, C. S., Stanton, M. E. Early cerebellar lesions impair eyeblink conditioning in developing rats: Differential effects of unilateral lesions on postnatal day 10 or 20. Behav Neurosci. 109 (5), 893-902 (1995).
- Gerwig, M., et al. Trace eyeblink conditioning in patients with cerebellar degeneration: Comparison of short and long trace intervals. Exp Brain Res. 187 (1), 85-96 (2008).
- LaBar, K. S., Disterhoft, J. F. Conditioning, awareness, and the hippocampus. Hippocampus. 8 (6), 620-626 (1998).
- McCormick, D. A., Steinmetz, J. E., Thompson, R. F. Lesions of the inferior olivary complex cause extinction of the classically conditioned eyeblink response. Brain Res. 359 (1-2), 120-130 (1985).
- Clark, R. E., Zola, S. Trace eyeblink classical conditioning in the monkey: a nonsurgical method and behavioral analysis. Behav Neurosci. 112 (5), 1062-1068 (1998).
- Anderson, B. J., Steinmetz, J. E. Cerebellar and brainstem circuits involved in classical eyeblink conditioning. Rev Neurosci. 5 (3), 251-273 (1994).
- Thompson, R. F., Krupa, D. J. Organization of memory traces in the mammalian brain. Annu Rev Neurosci. 17, 519-549 (1994).
- Miller, M. J., et al. fMRI of the conscious rabbit during unilateral classical eyeblink conditioning reveals bilateral cerebellar activation. J Neurosci. 23 (37), 11753-11758 (2003).
- Geinisman, Y., et al. Remodeling of hippocampal synapses after hippocampus-dependent associative learning. J Comp Neurol. 417 (1), 49-59 (2000).
- Ivkovich, D., Stanton, M. E. Effects of early hippocampal lesions on trace, delay, and long-delay eyeblink conditioning in developing rats. Neurobiol Learn Mem. 76 (3), 426-446 (2001).
- Moyer, J. R. Jr, Deyo, R. A., Disterhoft, J. F. Hippocampectomy disrupts trace eye-blink conditioning in rabbits. Behav Neurosci. 104 (2), 243-252 (1990).
- Solomon, P. R., Vander Schaaf, E. R., Thompson, R. F., Weisz, D. J. Hippocampus and trace conditioning of the rabbit's classically conditioned nictitating membrane response. Behav Neurosci. 100 (5), 729-744 (1986).
- Kronforst-Collins, M. A., Disterhoft, J. F. Lesions of the caudal area of rabbit medial prefrontal cortex impair trace eyeblink conditioning. Neurobiol Learn Mem. 69 (2), 147-162 (1998).
- Weible, A. P., McEchron, M. D., Disterhoft, J. F. Cortical involvement in acquisition and extinction of trace eyeblink conditioning. Behav Neurosci. 114 (6), 1058-1067 (2000).
- Thomas, J. D., Tran, T. D. Choline supplementation mitigates trace, but not delay, eyeblink conditioning deficits in rats exposed to alcohol during development. Hippocampus. 22 (3), 619-630 (2012).
- West, J. R., Hamre, K. M., Pierce, D. R. Delay in brain growth induced by alcohol in artificially reared rat pups. Alcohol. 1 (3), 213-222 (1984).
- Geiger, B. M., Frank, L. E., Caldera-Siu, A. D., Pothos, E. N. Survivable stereotaxic surgery in rodents. J Vis Exp. (20), e880(2008).
- Christian, K. M., Thompson, R. F. Neural substrates of eyeblink conditioning: acquisition and retention. Learn Mem. 10 (6), 427-455 (2003).
- Kishimoto, Y., Nakazawa, K., Tonegawa, S., Kirino, Y., Kano, M. Hippocampal CA3 NMDA receptors are crucial for adaptive timing of trace eyeblink conditioned response. J Neurosci. 26 (5), 1562-1570 (2006).
- Shors, T. J., et al. Neurogenesis in the adult is involved in the formation of trace memories. Nature. 410 (6826), 372-376 (2001).
- Tran, T. D., Stanton, M. E., Goodlett, C. R. Binge-like ethanol exposure during the early postnatal period impairs eyeblink conditioning of short and long CS-US intervals in rats. Dev Psychobiol. 49 (6), 589-605 (2007).
- Mizumori, S. J., Yeshenko, O., Gill, K. M., Davis, D. M. Parallel processing across neural systems: Implications for a multiple memory system hypothesis. Neurobiol Learn Mem. 82 (3), 278-298 (2004).
- Siegel, J. J., et al. Trace Eyeblink Conditioning in Mice Is Dependent upon the Dorsal Medial Prefrontal Cortex, Cerebellum, and Amygdala: Behavioral Characterization and Functional Circuitry(1,2,3). eNeuro. 2 (4), (2015).
- Murawski, N. J., Jablonski, S. A., Brown, K. L., Stanton, M. E. Effects of neonatal alcohol dose and exposure window on long delay and trace eyeblink conditioning in juvenile rats. Behav Brain Res. 236 (1), 307-318 (2013).
- Lindquist, D. H. Hippocampal-dependent Pavlovian conditioning in adult rats exposed to binge-like doses of ethanol as neonates. Behav Brain Res. 242, 191-199 (2013).
- Ivarsson, M., Svensson, P. Conditioned eyeblink response consists of two distinct components. J Neurophysiol. 83 (2), 796-807 (2000).
- Woodruff-Pak, D. S., Lavond, D. G., Thompson, R. F. Trace conditioning: abolished by cerebellar nuclear lesions but not lateral cerebellar cortex aspirations. Brain Res. 348 (2), 249-260 (1985).
- Takehara-Nishiuchi, K. The Anatomy and Physiology of Eyeblink Classical Conditioning. Curr Top Behav Neurosci. , (2016).
- Mattson, S. N., Schoenfeld, A. M., Riley, E. P. Teratogenic effects of alcohol on brain and behavior. Alcohol Res Health. 25 (3), 185-191 (2001).
- Goodfellow, M. J., Abdulla, K. A., Lindquist, D. H. Neonatal Ethanol Exposure Impairs Trace Fear Conditioning and Alters NMDA Receptor Subunit Expression in Adult Male and Female Rats. Alcohol Clin Exp Res. 40 (2), 309-318 (2016).
- Beylin, A. V., et al. The role of the hippocampus in trace conditioning: Temporal discontinuity or task difficulty? Neurobiol Learn Mem. 76 (3), 447-461 (2001).
- Port, R. L., Romano, A. G., Steinmetz, J. E., Mikhail, A. A., Patterson, M. M. Retention and acquisition of classical trace conditioned responses by rabbits with hippocampal lesions. Behav Neurosci. 100 (5), 745-752 (1986).
- Weiss, C., Bouwmeester, H., Power, J. M., Disterhoft, J. F. Hippocampal lesions prevent trace eyeblink conditioning in the freely moving rat. Behav Brain Res. 99 (2), 123-132 (1999).
- Brown, S. M., et al. Eyeblink conditioning deficits indicate timing and cerebellar abnormalities in schizophrenia. Brain Cogn. 58 (1), 94-108 (2005).
- Sears, L. L., Steinmetz, J. E. Effects of haloperidol on sensory processing in the hippocampus during classical eyeblink conditioning. Psychopharmacology. 130 (3), 254-260 (1997).
- Kronforst-Collins, M. A., Moriearty, P. L., Schmidt, B., Disterhoft, J. F. Metrifonate improves associative learning and retention in aging rabbits. Behav Neurosci. 111 (5), 1031-1040 (1997).
- Woodruff-Pak, D. S., Finkbiner, R. G., Sasse, D. K. Eyeblink conditioning discriminates Alzheimer's patients from non-demented aged. Neuroreport. 1 (1), 45-48 (1990).
- Oristaglio, J., Romano, A. G., Harvey, J. A. Amphetamine influences conditioned response timing and laterality of anterior cingulate cortex activity during rabbit delay eyeblink conditioning. Neurobiol Learn Mem. 92 (1), 1-18 (2009).
- Scavio, M. J., Clift, P. S., Wills, J. C. Posttraining effects of amphetamine, chlorpromazine, ketamine, and scopolamine on the acquisition and extinction of the rabbit's conditioned nictitating membrane response. Behav Neurosci. 106 (6), 900-908 (1992).
- Fortier, C. B., et al. Delay discrimination and reversal eyeblink classical conditioning in abstinent chronic alcoholics. Neuropsychology. 22 (2), 196-208 (2008).
הדפסות חוזרות והרשאות
