כתב יד זה מתאר את השימוש fluorogenic מקודד גנטית כתבים ביישום של הדמיה לחיות תאים עבור הבחינה של xenobiotic-induced סטרס חמצוני. זו גישה נסיונית מציע רזולוציית ייתכן ללא תחרות, רגישות וספציפיות תוך הימנעות רבים את חסרונותיה של שיטות קונבנציונליות המשמש את הגילוי של רעילות סטרס חמצוני.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
הדמיה גישות הערכות של רעילות לחץ חימצוני באמצעות חיישנים Fluorogenic מקודד גנטית
במאמר זה
סיכום
תקציר
בזמן סטרס חמצוני הוא מנגנון רעילות מצוטט לעתים קרובות, שיטות קונבנציונליות ללמוד אותו סובלים מספר חסרונות, כולל הרס של המדגם, החדרת חפצים פוטנציאל חוסר ירידה לפרטים עבור תגובתי מינים מעורבים. לפיכך, יש צורך הנוכחי בשדה של הרעלים עבור שיטות הרסניות, רגיש, ספציפי יכול לשמש כדי להתבונן ולכמת לפליטת תאיים חמצון-חיזור, יותר נפוץ המכונה סטרס חמצוני. כאן, אנו מציגים שיטה לשימוש של שני חיישנים מקודד גנטית fluorogenic, roGFP2 ו- HyPer, כדי לשמש מחקרי הדמיה לחיות תאים להתבונן בהשפעה xenobiotic תגובות חמצון. roGFP2 equilibrates עם גלוטתיון חמצון-חיזור פוטנציאליים (EGSH), בעוד HyPer ישירות מאתר חמצן (H2O2). שני חיישנים יכול להתבטא לתוך סוגי תאים שונים באמצעות תרביות תאים או התמרה חושית, ניתן לפלח כך תאים סלולריים ספציפיים. והכי חשוב, מיקרוסקופיה לחיות תאים באמצעות חיישנים אלה מציע יכולות ברזולוציה גבוהה אינה אפשרית בשיטות הקונבנציונלית. שינויים בעוצמת פלורסצנטיות למצלמות 510 ננומטר משמש בתור המדידה עבור שני חיישנים fluorogenic מקודד גנטית כשהוא מתרגש ברצף על ידי 404 nm ואור 488 ננומטר. מאפיין זה עושה רציומטרי שני חיישנים, סילוק חפצים מיקרוסקופ נפוצות ובתיקון הבדלים בביטוי חיישן בין תאים. מתודולוגיה זו יכול להיות מיושם במגוון פלטפורמות fluorometric מסוגל פליטת איסוף ומרגש באורכי גל מרשם, שהופך אותו מתאים לשימוש עם מערכות הדמיה קונאפוקלית מיקרוסקופ רחב-שדות קונבנציונלי, צלחת הקוראים. שני חיישנים fluorogenic מקודד גנטית שימשו במגוון של סוגי תאים ומחקרים על רעילות המוצר לפיקוח אלקטרוני הסלולרGSH ו- H2O2 הדור בזמן אמת. שמפורטות כאן היא שיטה סטנדרטית שניתן לסגלה באופן נרחב על פני סוגי תאים ופלטפורמות fluorometric עבור היישום של roGFP2 ושל HyPer לחיות תאים הערכות רעילות של סטרס חמצוני.
מבוא
המונח "עקה" מצוטט לעתים קרובות כמנגנון של רעלים, עדיין רחוקות הוא מונח זה תיאר באופן ספציפי. סטרס חמצוני ניתן להפנות למספר תהליכים תאיים, כולל דור של מינים חמצן תגובתי, הנזק שנגרם על ידי רדיקלים חופשיים, החמצון של מולקולות נוגדות חמצון, וגולש אפילו את הפעלת איתות ספציפיים. מגוון רחב של מזהמים סביבתיים1,2 ו-3,סוכנים התרופות4 תועדו לזירוז סטרס חמצוני על ידי פעולה ישירה או של המתחם xenobiotic עצמה5 ,6 או שנית על-ידי ייצור של חמצון מינים כחלק תגובת תאי7,8,9,10. לכן זה עניין רב ב באימון במדויק לבחון ולאפיין את תהליכי החמצון שמוביל תוצאות שליליות. שיטות קונבנציונליות של מדידת לחץ חימצוני לערב זיהוי של מולקולות מחמצנים11,12,13,14,15 או נוגדי חמצון16 ,17,18,19,20, או מדידה ישירה של מינים תגובתי עצמם21,22,23, 24. עם זאת, שיטות אלה מצריכים בדרך כלל הפרעה הסלולר, אשר לעתים קרובות צורכת את הדגימה מבטלת רזולוציה מרחבית, פוטנציאל מציג ממצאים25. בפיתוח שיטות יותר רגיש וספציפי של זיהוי המינים חמצון, סמנים של סטרס חמצוני ישימה בהרחבה על החקירה של ההשפעות השליליות של החשיפה xenobiotic.
מיקרוסקופ לחיות תאים באמצעות דור חדש של חיישנים fluorogenic מקודד גנטית התפתחה כלי רב עוצמה כדי לפקח על מצב חמצון-חיזור תאיים של תאים חיים. חיישנים אלה מתבטאים בדרך כלל באמצעות וקטור תחת השליטה של יזם ויראלי הוא הציג באמצעות מתודולוגיות תרביות תאים או התמרה חושית. ביטוי גבוה יעילות אינם הכרחיים, מאז התאים לבטא את החיישן פלורסנט ניתן לזהות בקלות באופן חזותי. עבור הערכות רעילות, התאים לבטא חיישנים אלה יכול להיות שנצפו באמצעות מיקרוסקופ פלורסצנטיות כפי שהם נחשפים תרכובות xenobiotic בזמן אמת. עיצוב ניסיוני זה מאפשר מדידות חוזרות באותו התא, המאפשר הבסיסית לכל תא הוקמה לשמש את שליטתה. ברזולוציה הטמפורלית גבוהה המוענקת על ידי הדמיה לחיות תאים הוא מתאים היטב עבור זיהוי אירועים חמצוני, במיוחד אלה צנוע בסולם ריכטר או ארעי בטבע. בנוסף גם רגישה וגם ספציפית כדי מולקולות היעד שלהם, ידי קרינה פלואורסצנטית של כמה חיישנים אלה יכולים להיות שמחים באמצעות שני אורכי הגל של האור. תופעה זו מאפשרת הפליטה לבטא יחס, דבר המאפשר הבחנה של האות שינויים הקשורים עם חיישן אותנטי תגובות מאלה שנגרמו על ידי חפצים כגון וריאציות חיישן ביטוי, עובי התא, מנורת פלורסנט העוצמה, photobleaching, ורגישות של גלאי קרינה פלואורסצנטית26. יתרון נוסף של השימוש של חיישנים fluorogenic הוא כי הם ניתן לפלח כך ספציפי מדורים הסלולר, יצירת רמת רזולוציה מרחבית ללא תחרות על ידי שיטות קונבנציונליות25,26,27.
יש לי משפחה גדולה של חיישנים מקודד גנטית בהתבסס על חלבון פלואורסצנטי ירוק (GFP) פותחה, מאופיין לדווח על מגוון רחב של סמנים פיזיולוגיים, כולל ה-pH, טמפרטורה, ריכוזי סידן, היחס ATP/ADP25 ,28,29,30,31. בין אלה נכללים חיישנים של גלוטתיון חמצון-חיזור פוטנציאליים (EGSH), מימן על-חמצני (H2O2) על כל שטח התקליטור. בעוד חיישנים אלה פותחו עבור יישומים חמצון-חיזור ופיזיולוגיה, הם גם הותאמו ללמוד xenobiotic-induced סטרס חמצוני. באופן ספציפי, פרוטוקול שמפורטות כאן מתאר את השימוש roGFP2 חיישן אלקטרוניGSH את החיישן2 2O H HyPer.
roGFP2 מדווח על הפוטנציאל חמצון-חיזור תאיים מופחתת ו מחמצנים גלוטתיון (GSH/GSSG) דרך העברת חמצון-חיזור מעורבים peroxidase גלוטתיון (GPx), glutaredoxin (Grx) ו גלוטתיון רדוקטאז (גר) (איור 1)25, 32 , 33. גלוטתיון הוא המולקולה השולט הסלולר נוגד חמצון, והוא נוכח בעיקר בצורתו מופחתת (GSH) בריכוזים millimolar ב-25,ציטוזול34. בעוד EGSH לא נקשר לכל תוצאה פונקציונלית, הוא מוכר בתור מדד חשוב של מצב חמצוני תאיים34. גידול קטן יחסית של הריכוז של GSSG גורמת עלייה EGSH זה לזיהוי על-ידי roGFP2. לא פחות חשוב, ניטור של EGSH השימוש roGFP2 במהלך חשיפות xenobiotic יכול באופן פוטנציאלי לגלות הרבה על מנגנון הפעולה במספר נקודות הממסר חמצון-חיזור ולעודד מסלולים הקשורים, כגון פוספט פנטוז (איור 1 )35. החיישן השני שנדונו כאן, HyPer, הוא בדיקה תאיים של2 2O H נגזר מן הכניסה של חלבון פלואורסצנטי צהוב (YFP) לתוך תחום הרגולציה של חיידקי H2O2-תמלול רגיש פקטור OxyR136. למרות זאת בעבר נחשב של חמצן תגובתי מזיק ביניים, H2O2 הוא יותר ויותר להכרה של מולקולת איתות תאיים חשובים תחת התנאים הפיזיולוגיים37, 38, רומז כי תפקידים לא מזוהה עבור H2O2 קיימים רעלים גם כן. למשל, עודף H2O2 הנגרם על ידי חשיפה xenobiotic יכול להיות הקדמה dysregulation באיתות או שינוי מצב ביואנרגיה.
שני חיישנים fluorogenic מקודד גנטית הביעו במספר שורות תאים הוקמה, כולל את האנושי קרצינומה epidermoid תא A431 ובין תאי אפיתל הסמפונות אדם הקו BEAS-2B, לצפות לשינויים EGSH ו- H2 O2 בתגובה מגוון של חשיפות רעילות. אלה כוללים מזהמים גזי (אוזון35), מרכיבים מסיסים של חלקיקי החומר (1, 2 naphthoquinone39,40 ואבץ41), ניקל חלקיקים (נתונים שלא פורסמו). מחקרים אלה מייצגים רק קבוצת משנה קטנה של היישומים האפשריים של חיישנים שני אלה. תיאורטית, כל סוג התא מסוגל קבלת ולבטא את ה-DNA של חיישנים אלה באמצעות שיטות בביולוגיה מולקולרית קונבנציונלי יכול להיות מנוצל כדי להעריך את ההשפעות של ואינטראקציות חשד לשנות המדינה חמצוני הסלולר. נכון להיום, אחד או יותר של חיישנים אלה נתגלתה ובמיקומים שונים אאוקריוטים פרוקריוטים, כולל מספר מידע יונקים, צמח, בקטריאלית של שמרים תא סוגי25,26,36,42. המדידה עבור חיישנים2 2O EGSH ו- H הוא שינוי בעוצמת פלורסצנטיות הנפלטים-510 ננומטר על עירור עם 488, 404 אור ננומטר. שיטה זו היא יכולת הסתגלות נרחב הפלטפורמות fluorometric, כולל סוגים שונים של מיקרוסקופ (קונאפוקלית, שדה רחב), קוראי צלחת. השיטה המוצגת כאן מאפשר תצפית רגיש וספציפי של EGSH ו- H תאיים2O2 במערכות במבחנה רעילות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
1. הכנת תאים
הערה: הליך זה מתאר את התמרה חושית lentiviral של קו תא מונצחים (BEAS-2B; בקרת האוויר, במנאסס, VA) כדי להביע את הכתב הרצויה (roGFP2 או HyPer). יכול להיות מנוצל קווים/סוגי תאים אחרים ו/או שיטות של העברה גנטית, כולל תרביות תאים, כל עוד הם תוצאה של רמה של הכתב ביטוי הולם לדמיין מספר מספיק של הבעת חיישן תאים לכל שדה ראייה (בדרך כלל 5-10 תאים). אם משתמש בשיטות תרביות תאים, ההליך יש לבצעו בצלחת זה שבסופו של דבר ישמש עבור שיטת ניתוח (transfect למשל, התאים אותה המנה זה יוצגו בפני המיקרוסקופ). השלבים המתוארים להלן מספקים פרטים להכנת תא transductions שיש לבצע בצלחת התרבות תאים 6-. טוב. אם תבנית זו אינה הגודל המתאים עבור היישום הרצוי, הרבה ספינות אחרות.
- מגדלים תאים כ 40-60% זרימה בתקשורת הצמיחה רגילה.
הערה: מחקר זה מנוצל הקו תאי אפיתל הסמפונות אדם, BEAS-2B, גדלו ב מדיום הגידול תקין (KGM). - בדיוק לפני התמרה חושית, החלף התקשורת צמיחה על התאים µL 500 של מדיה ללא סרום המכיל את הכמות המתאימה של וירוס, כפי שמחושבת באמצעות הנוסחה:
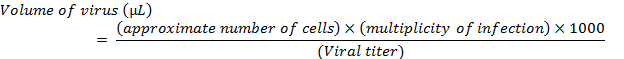
- התמרה חושית של תאים BEAS-2B, לשימוש תקין ללא סרום הבזליים בינוני (KBM) כדי להחליף את התקשורת צמיחה KGM במהלך incubations ויראלי.
הערה: החישוב הנ ל היא התמרה חושית יחיד של באר אחת של תאים בתבנית 6-. טוב. במידת הצורך, לבצע transductions של כמה בארות יכול להתבצע על ידי התאמת את הנוסחה עם כפל במספר בארות כדי להיות transduced. לשימוש lentiviral transductions, ריבוי של זיהום (MOI) בין 5 ל- 20. לשימוש adenoviral transductions, MOI של בין 100 ל 500.
- התמרה חושית של תאים BEAS-2B, לשימוש תקין ללא סרום הבזליים בינוני (KBM) כדי להחליף את התקשורת צמיחה KGM במהלך incubations ויראלי.
- דגירה תאים עם התערובת ויראלי ב 37 מעלות צלזיוס במשך 4 שעות, מפיץ את חלקיקי נגיפי בצלחת כל 30 עד 60 דקות עם נדנדה קצרה או מתערבל תנועה.
- להוסיף 1 מ"ל של צמיחה מלאה מדיה למנה, דגירה ב 37 מעלות צלזיוס במשך שעה 4-16 נוספים.
- להסיר את כל המדיה והחלף צמיחה מלאה טריים מדיה.
- להמשיך לגדול, מעבר תאים, להרחיב כנדרש.
הערה: תאים יתחיל ניכרת לבטא את החיישן בתוך 12-48 שעות. אם וקטור lentiviral שימש את התמרה חושית, ביטוי יציב של החיישן הרצוי צריך להמשיך מעבר במעברים. - עבור הערכות מבוסס מיקרוסקופיה, תאי זרע לתוך הכוס עם תחתית מיקרוסקופ מנות ולגדול למפגש הרצוי (≥70 - 80%) לפני הדמיה.
הערה: זריעה צפיפות תיקבע בהתאם לגודל המנה, קצב צמיחה של התאים-הקו בשימוש, ואת הזמן המבדק בעקבות זריעה. לדוגמה, זרע 300,000 BEAS-2B תאים לתוך תבשיל 35 מ מ להניב כ 70-80% זרימה לאחר יום 1 של צמיחה.
2. מיקרוסקופ הקמה
הערה: הפרוטוקול המתואר להלן מתבצעת באמצעות מיקרוסקופ קונפוקלי מצויד עם קווי לייזר-404 ו- 488 ננומטר. אמצעים אחרים של ביצוע הערכות fluorometric של החיישן תיאר בתוך פרוטוקול זה ב excitations/פליטה הקבוע שלהם אמור להניב גם נתונים קיימא. חשוב, הגדרות ציוד ניתן להשתנות במידה רבה בהתאם לסוג, גיל, מצב של המכשיר בשימוש; לכן, לכל הערכים כלי שהוזכרו לא ייתכן ספיציפית הציוד בשימוש במעבדות אחרות.
- לבצע כל ניתוח הדמיה באמצעות בקרת האקלים כדי לשמור על הטמפרטורה המתאימה (למשל, 37 מעלות צלזיוס), לחות (בדרך כלל > 95% לחות יחסית), ו/או גז ריכוז (למשל, 5% CO2) מתאים התאים לאורך משך הניסוי.
- אם באמצעות ערכים גבוהים של לחות יחסית, לשמור על כל המשטחים אולי יבואו במגע עם האווירה humidified (למשל., המטרה מיקרוסקופ) או מעט מעל הטמפרטורה שבה הלחות נוצר על מנת למנוע עיבוי. זה יכול להתבצע עם השימוש של חימום אובייקטיבי ו/או חימום הקלטת, פקד החימום המתאים.
- הפעל את כל הרכיבים מיקרוסקופ ולהגדיר כל הציוד הנדרש עירור רציפים ב nm 488, 404 עם פליטה-510 ננומטר. ודא שכל הרכיבים של תצורת אופטי מוגדרים כראוי עבור רכישת בזמן אמת.
- הגדרת תא סביבתיים הבמה-העליון כדי לשמור על טמפרטורה קבועה ב 37 מעלות צלזיוס, 5% CO2 אווירה, ו > 95% לחות. לפני הפעלת ייבוא תמונות, equilibrate תא הסביבה לפחות 10 דקות לאחר הסידור הראשוני של כל הפקדים סביבתיים.
הערה: תנאים סביבתיים להיות מסולק או מותאמים בהתאם לאורך הניסוי, סוג התא, ואת החשיפה בשימוש. - במקום המנה של תאים (שלב 1.7) על הבמה-העליון בתוך תא סביבתיים.
- עם העדשה המטרה הרצויה, למצוא את המטוס מוקד של תאים באמצעות עינית אור לבן ולהבטיח מורפולוגיה תקינה.
הערה: 1.4 נה 60 X ויולט-מתוקן, שקוע-שמן עדשה המטרה הוא נפוץ, אשר מאפשרת זיהוי של תאים תאיים תוך מיקסום של רזולוציה אופטית של מערכת קונפוקלי. - בדוק את הביטוי זריחה של התאים בתוך שדה הראייה. . לעשות את זה תוך כדי להמחיש את התאים בתאורה פלורסצנטיות שדה רחב עם ערכת הסינון המתאימה, כגון fluorescein isothiocyanate (FITC) בשלב זה, באמצעות שדה רחב תאורה בזמן מחפש דרך העיינית של המצלמה נוח יותר כי זה קל יותר להעביר את המנה לבחירת שדה של תאים ללמוד. באופן כללי, בחר תצוגה של שדה המכילה תאים לפחות 5-10 הם המבטאים את החיישן, כמצוין על-ידי קרינה פלואורסצנטית ירוק.
- לחלופין, לבצע הערכה confocally באמצעות עירור לייזר באורך-גל התואמת ביותר החיישן באות לידי ביטוי (488 ננומטר בדרך כלל עובד בצורה הטובה ביותר).
הערה: בשל תכונותיהם פלורסנט פנימי, זה יהיה קשה יותר להמחיש התאים לבטא HyPer מאשר אלה roGFP2 לביטוי באמצעות או FITC או ב- 488 ננומטר. עם זאת, זה עדיין צריך להיות ניתן לראות תאים להתעלף.
- לחלופין, לבצע הערכה confocally באמצעות עירור לייזר באורך-גל התואמת ביותר החיישן באות לידי ביטוי (488 ננומטר בדרך כלל עובד בצורה הטובה ביותר).
- לאחר מבט של השדה הרצוי נמצא, סגור תא סביבתיים.
הערה: השתמש שמירה על מיקוד התכונה, לעיתים קרובות זמינה על עמדות המיקרוסקופ המשוכלל, כדי להקל על תחזוקה של מטוס מוקד יציבה לאורך כל תקופת המחקר. - בצע כיוונון לפרמטרים רכישה כדי להבטיח הערכת אופטימלית של החיישן עניין לאורך תקופת החשיפה הרצויה. להלן המלצות וגישות עבור הדמיה קונאפוקלית של חיישן תגובות:
- התאם את עוצמת הלייזר עירור-488 ננומטר, פליטה-510 ננומטר. בחר רמת כוח לייזר המאפשר ויזואליזציה של התאים, לשמור את זה קבוע בין דוגמאות או שכפל מנות.
הערה: במחקר זה, 12% ל- 1.5% לייזר כוח שימשו את 488 השורות ו- 404 ננומטר לייזר, בהתאמה. - השתמש בפקדים קונאפוקלית של רכישת התוכנה כדי להבטיח כי המטוס מוקד שנבחר הותאם מבחינת עוצמת פליטת קרינה פלואורסצנטית מקסימלי במרכז של התאים (ציר z) על-ידי סריקה-488 ננומטר תוך התאמת את מטוס ה-z. זה נעשה קל יותר תוך שימוש בהגדרה רווח גבוה כשהוא חיפש המטוס z שתוצאתו התאים ביותר חשיפת. לאחר כבר מצאו את המטוס מוקד המתאים, לחזור סביבה אופטימאלית זריחה של הכתב בשימוש ללא oversaturating את הפיקסלים הנצפה ביותר של הרווח.
הערה: ההגדרות לייזר ורווח המתאימות מציאת והתבוננות תאים במהלך ניסויים היא תלויה לחלוטין המערכת קונאפוקלית מנוצל. באופן כללי, ברגע התאים נמצאו בתחום התצוגה, מומלץ כי כמות מזערית של עוצמת הלייזר להיות (בדרך כלל % ≤20), משמשת סריקת יתר של תאים באמצעות אור לייזר עוצמה עשוי לגרום לזיהוי חמצוני שינויים על-ידי החיישן. - להשתמש את הרווח כדי לכוונן את פלורסצנטיות בסיסית. עם roGFP2, הקמת הבסיס בקרבת הגבול העליון (≈ 90% שהבוטות היחסית) של המכשיר ללא רוויית יתר, כמו תאים אלה יאבדו 510 ננומטר פלורסצנטיות המושרה על ידי עירור 488 ננומטר, כאשר EGSH מגביר. לעומת זאת, עוצמת קרינה פלואורסצנטית עם 488 ננומטר עירור צריך להיות נמוך (≈ 10% שהבוטות היחסית) בנקודת ההתחלה כדי HyPer לבטא תאים, כמו תאים אלה יקבל 510 ננומטר פלורסצנטיות בעוצמה כאשר H2O2 מזוהה.
- חזור על שלבים 2.9.2 ו 2.9.3 עם עירור ב 404 nm, פליטה-510 ננומטר. רווח הגדרות עבור הגל עירור nm 404 הן מול אלה המשמשות עם 488 ננומטר עירור עבור כל חיישן (קרי, הבסיסית נמוכה קרינה פלואורסצנטית (≈ 10% שהבוטות היחסית)-404 nm עבור roGFP2, בסיסית גבוהה קרינה פלואורסצנטית (≈ 90% שהבוטות היחסית) עבור ה2 חיישן2 O).
הערה: באופן כללי, קרינה פלואורסצנטית (פליטת 510)-404 nm עירור יהיה נמוך במידה ניכרת מהשיעור כי השגה עם 488 ננומטר עירור בתאים לבטא גם roGFP2 וגם HyPer, כמו הפסגה nm 404 הוא עירור קלים יחסית המרבי עבור שני אלה חיישנים.
- התאם את עוצמת הלייזר עירור-488 ננומטר, פליטה-510 ננומטר. בחר רמת כוח לייזר המאפשר ויזואליזציה של התאים, לשמור את זה קבוע בין דוגמאות או שכפל מנות.
3. חדרי קירור והקפאה
- להגדיר לתוכנה רכישה לגרות באופן רציף בין שני אורכי הגל עירור (488 הראשון ננומטר ולאחר מכן 404 ננומטר) לאסוף את פליטת עבור שניהם-510 ננומטר במרווח זמן קבוע מראש לכל אורך הניסוי הרצוי (למשל לכידת תמונות כל 60 s עבור 60 דקות).
- לחלופין, לרכוש תמונות באופן ידני לפני ואחרי חשיפות אם העיתוי משוער של שינויים ב2O EGSH או H2 ידועים של xenobiotic הנבדקת. עם זאת, זה עלול להוביל לאובדן של רזולוציה טמפורלית.
- להערכת בזמן אמת של פרמטרים ניסיוני, לבחור תאים המבטאים חיישן לפחות 5-10 בשדה, להקים אותם כמו אזורים מעניינים ("ROIs") כדי לעקוב אחר השינויים פלורסצנטיות שלהם במהלך הניסוי.
הערה: שלב זה הוא אופציונלי, והוא יכול להתבצע לאחר הניסוי בהתבוננות ישירה בזמן אמת אינה רצויה או מגבלות תוכנה למנוע ניטור רציף. בהתאם האוכלוסייה תא, הבחירה של חיישן לבטא תאים ROIs עשוי לייצג מגוון של רמות הביטוי על-פני תאים.- מחקרים אלו, להוסיף את הסביבה toxicant 9,10-phenanthrenequinone (9,10-PQ) או מי חמצן (H2O2) לאחר תקופה 5-מין בסיסית.
- להכין כל ריאגנטים לשימוש מאוחר יותר בפרוטוקול זה. 9,10-PQ ב דימתיל סולפוקסיד (דימתיל סולפוקסיד) כדי ריכוז של 15 מ מ, ו לדלל בתקשורת הבזליים להניב הפתרון עובד 250 מיקרומטר. בנוסף, להכין את הפתרון עובד של מימן על-חמצני במים שיניבו ריכוז סופי של 1 מ מ על הזרקה.
- לאחר הפרמטרים ניסיוני הוגדרו, להתחיל קורס בזמן הרכישה. להקים תקופה בסיסית לפחות 5 דקות (או 5 נקודות נתונים) לפני הפעלת חשיפות xenobiotic.
- לחשוף את התאים כדי toxicant תחת חקירה באמצעות גישות קונבנציונליות במבחנה מינון. להכין חומרים מסיסים במים או בחומר ממיס מתאים אחר, להזריק ישירות לתוך כלי התקשורת.
- אם, ממיסים אורגניים (למשל דימתיל סולפוקסיד או אתנול) נדרשים לשמור על ריכוז הממס הסופי או תחתיו 0.1%. ודא כי הממס אינו מייצר אפקט על EGSH או H2O ייצור2 עם פקד הרכב בקערה נפרדת של תאים.
- עבור תרכובות עם מסיסות נמוכה יותר, הוסף צעד ערבוב באמצעות micropipette בפרוטוקול לאחר ההזרקה מתבצעת. משאבה חשיפות גז ישירות אל החדר סביבתיים באמצעות תערובת גז הספק המתאים.
- הצג שינויים פלורסצנטיות במהלך תקופת החשיפה. לבצע זריקות עוקבות כנדרש. . שמור על עצמך לא להעביר את המנה במהלך זריקות, כך לאותם התאים עוקבים לאורך כל הקורס כל הזמן בזמן עם תמונה באותו מישור מוקד.
- בסוף הניסוי, לחשוף את התאים לפקדים המתאימים. עבור שני חיישנים fluorogenic מקודד גנטית, להוסיף ריכוזים מסוים של תרכובות ידוע נישחק ולהפחית חיישנים אלה במהלך הפגנה המחודד של ההיענות שלהם רציומטרי. H2O2 ו- dithiothreitol (DTT) לשמש הפקדים המתאימים נישחק ולהפחית את שני חיישנים. בדרך כלל, ריכוז סופי של 100-1, 000 מיקרומטר H2O2, ואחריו 1-5 מ מ dithiothreitol (DTT), מאפשר למשתמש באופן מלא נישחק ולהפחית חיישנים אלה.
- מחקרים אלו, לשימוש 1 מ מ H2O2 ואחריו 5 מ מ DTT כדי לקבוע את התגובה חיישן המרבי.
- המתן לפחות 5 דקות כדי לאפשר את החיישן להגיב ולאחר ולאחר מכן הוסף סוכן צמצום, כגון DTT, כדי להפחית את סניור ולהחזיר אותה לרמה של זריחה ליד או שלה הבסיסית הוקמה.
הערה: השימוש של פקדים בשלב זה הוא קריטי עבור נורמליזציה, צריכה להתבצע בסוף בכל ניסוי כדי לקבוע את הטווח הדינמי של החיישן בכל תא. עבור roGFP2, aldrithiol ניתן גם להוסיף בסוף הניסוי. Aldrithiol עוקף את הממסר חמצון-חיזור roGFP2 להתחמצן החיישן ישירות. פעולה זו שימושית להעריך תפקוד חיישן בעקבות החשיפה xenobiotic.
4. ניתוח נתונים
- אם לא כבר הוקם, לצייר ROIs מסביב לתאים כדי להיות מנותח. להשתמש התוכנה המתאימה כדי למדוד את עוצמת קרינה פלואורסצנטית כל רועי-כל גל לאורך זמן. ודא כי התאים לא זז או הלוח שינוי במהלך הריצה.
הערה: הקמת ROIs מושגת בקלות הרבה ביותר על ידי ציור אזור סגור כי בעקבות התבנית פלורסנט הביטוי של כל תא. כדי לסייע עוד יותר עם התהליך הזה, יכול בשכבות תמונה המשודרת אור (או brightfield) של התאים בתוך שדה הראייה הוקמה על גבי התמונה פלורסנט במאמצים כדי להגדיר גבולות התא. עם זאת, השימוש של תמונת אור המשודרת דורשת מהמשתמש ללכוד ערוץ נוסף (קבוצת תמונות) לאורך כל הקורס של הניסוי. לחלופין, יצרנים מסוימים לשלב אלגוריתמים תוכנת הדמיה שלהם להשתמש פרמטרים ספציפיים כגון עוצמת סף להקים ROIs שיטה כמותית יותר, פחות סובייקטיבי. - ייצוא הנתונים לתוכנת ניתוח הרצוי (למשל, גיליון אלקטרוני).
- לחשב את התגובה חיישן רציומטרי עבור כל רועי בכל נקודה בזמן באמצעות הנוסחאות:
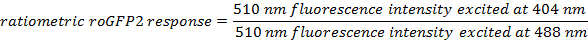
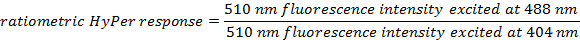
- עבור כל נקודת זמן, ממוצע הערכים המחושבים רציומטרי של כל ROIs.
- לחשב את הערך בסיסית, אשר ישמש כדי לנרמל את הנתונים, על-ידי חישוב ממוצע ערכי רציומטרי בעבר מחושב (שלב 4.4) שנאספו לפני תוספת של xenobiotic (למשל, הנקודות הראשונות של חמש פעמים).
- לנרמל את הערכים רציומטרי מהשלב 4.4 על ידי חלוקת כל ערך לפי הערך הבסיסית מחושבת באופן 4.5. יחס מנורמל יהיה מרכז סביב הערך 1 בנקודת ההתחלה, תוך עליות EGSH או H2O2 זריקות הבאים יגרום היחס להגדיל. הערכות של xenobiotic זה לגרום שינויים חמצוני נוטים תשואות הערכים בטווח של 3 - 6 פעמים הערך בסיסית.
- כדי לסייע השוואת התגובות בתוך ועל -פני ניסויים, לבטא את הנתונים מנורמל כאחוז של תגובת החיישן מקסימאלית על-ידי הגדרת תגובת חמצון שליטה (למשל, 1 מ מ H2O2) כ- 100%.
הערה: אם הבעת נתונים כאחוז של תגובת החיישן מקסימאלית, זה קריטי כדי להבטיח כי ריכוז זהה של חמצון שליטה משמש באופן עקבי לאורך ניסויים. כל הנתונים נגזר ניתוח הדמיה לחיות תאים הוא נוטה קונבנציונלי pair-wise group-wise סטטיסטי וניתוח שייבחרו שיקול דעתו של החוקר.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
השימוש roGFP2 HyPer באיתור שינויים EGSH ו- H תאיים2O2 היה טוב כפי שתוארה לעיל25,36,42,43 , הוא שמוצג כאן. תמונות קונאפוקלית של תאים לבטא roGFP2 בסיסית, הבאים תוספת של2O H2 ו- DTT מוצגים באיור2. נתוני תמונות שנאספו לאורך כל הניסוי היו לאחר מכן לייצא, ניתח כמתואר בסעיף 4 של הפרוטו...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
השימוש roGFP2 HyPer באיתור שינויים תאיים EGSH ו- H2O2, בהתאמה, כבר היטב תיאר הקודם מחקרים פיזיולוגיים רעילות 25,35,36 ,39,40,41,42,43. פרוטוקול שמפורטות כאן דוחות דרך יעילה כדי ליישם חיישנים מקודד גנטית חמצון-חיזור אלה המחו...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחקר המתואר במאמר זה יש שנסקרו על ידי הלאומי לבריאות, מעבדת המחקר השפעות סביבתיות, הסוכנות להגנת הסביבה של ארה ב, ואף אושרו לפרסום. התכנים של מאמר זה לא יפורש לייצג את הסוכנות מדיניות, ולא עושה איזכור שמות מסחריים או מוצרים מסחריים מהווים המלצה או המלצה לשימוש.
תודות
המחברים רוצה להודות Lavrich שמלת Katelyn לקבלת סיוע עם עיצוב ניסיוני ועורך כתב היד.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| roGFP2 פלסמיד | אוניברסיטת אורגון | N / A | מתנה נדיבה של S.J. רמינגטון |
| HyPer פלסמיד | Evrogen | FP941 | |
| מי חמצן | סיגמא אולדריץ' | H1009 | |
| דיתיותרייטול | סיגמא אולדריץ' | 10708984001 | |
| 9,10-פנאנתרנקווינון | סיגמא אולדריץ' | 156507 | |
| שחור כלים עם תחתית זכוכית קיר | טד פלה | 14029-20 | |
| קו תאים BEAS-2B אוסף | תרבות מסוג אמריקאי | CRL-9609 | |
| קרטינוציט בזאלי בינוני | לונזה | 192151 | |
| קרטינוציטים גידול בינוני BulletKit | Lonza 192060 | ||
| Excel | Microsoft Office Suite | N/A | |
| NIS-Elements AR Nikon | N/A | ||
| מערכת הדמיה קונפוקלית Nikon C1si | Nikon | N/A |
מקורות
- Cross, C. E., et al. Environmental oxidant pollutant effects on biologic systems: a focus on micronutrient antioxidant-oxidant interactions. Am J Respir Crit Care Med. 166, 44-50 (2002).
- Kobzik, L. Environmental particulate-mediated cytokine production in lung epithelial cells (A549): role of preexisting inflammation and oxidant stress. J Toxicol Environ Health. 55, 31-44 (1998).
- Jaeschke, H., McGill, M. R., Ramachandran, A. Oxidant stress, mitochondria, and cell death mechanisms in drug-induced liver injury: lessons learned from acetaminophen hepatotoxicity. Drug Metab Reviews. 44, 88-106 (2012).
- Wolf, M. B., Baynes, J. W. The anti-cancer drug, doxorubicin, causes oxidant stress-induced endothelial dysfunction. Biochim Biophys Acta. 1760, 267-271 (2006).
- Kumagai, Y., Shinkai, Y., Miura, T., Cho, A. K. The chemical biology of naphthoquinones and its environmental implications. Annu Rev Pharmacol Toxicol. 52, 221-247 (2012).
- Pham, H. T., Maccarone, A. T., Campbell, J. L., Mitchell, T. W., Blanksby, S. J. Ozone-induced dissociation of conjugated lipids reveals significant reaction rate enhancements and characteristic odd-electron product ions. J Am Soc Mass Spectrom. 24, 286-296 (2013).
- Abdel-Malek, Z. A., Kadekaro, A. L., Swope, V. B. Stepping up melanocytes to the challenge of UV exposure. Pigment Cell Melanoma Res. 23, 171-186 (2010).
- Berisha, H., Pakbaz, H., Absood, A., Foda, H., Said, S. Nitric oxide mediates oxidant tissue injury caused by paraquat and xanthine oxidase. Ann N Y Acad Sci. 723, 422-425 (1994).
- Gao, X., et al. Mitochondrial dysfunction may explain the cardiomyopathy of chronic iron overload. Free Radic Bio Med. 49, 401-407 (2010).
- Shukla, A., et al. Asbestos induces mitochondrial DNA damage and dysfunction linked to the development of apoptosis. Am J Physiol Lung Cell Mol Physiol. 285, 1018-1025 (2003).
- Charles, R., Jayawardhana, T., Eaton, P. Gel-based methods in redox proteomics. Biochim Biophys Acta. 1840, 830-837 (2014).
- Thornalley, P. J., Rabbani, N. Detection of oxidized and glycated proteins in clinical samples using mass spectrometry-a user's perspective. Biochim Biophys Acta. 1840, 818-829 (2014).
- Arato, S., Ito, H., Miyashita, K., Hayakawa, K., Itabashi, Y. A facile method for the detection of aldehydes in oxidized lipids using solid-phase microextraction fiber and gas chromatograph equipped with a septum-free injector. J Oleo Sci. 58, 17-22 (2009).
- Collins, A. R. Measuring oxidative damage to DNA and its repair with the comet assay. Biochim Biophys Acta. 1840, 794-800 (2014).
- Churg, A., Keeling, B., Gilks, B., Porter, S., Olive, P. Rat mesothelial and tracheal epithelial cells show equal DNA sensitivity to hydrogen peroxide-induced oxidant injury. Am J Physiol Lung Cell Mol Physiol. 268, 832-838 (1995).
- Fraga, C. G., Oteiza, P. I., Galleano, M. In vitro measurements and interpretation of total antioxidant capacity. Biochim Biophys Acta. 1840, 931-934 (2014).
- Niki, E., Noguchi, N. Evaluation of antioxidant capacity: what capacity is being measured by which method. IUBMB Life. 50, 323-329 (2000).
- Pharikal, K., Das, P., Dey, C., Dasgupta, S. Tissue ascorbate as a metabolic marker in cadmium toxicity. Int J Vitam Nut Res. 58, 306-311 (1987).
- Tabata, M., Totani, M., Murachi, T. A chemiluminometric method for NADPH and NADH using a two-enzyme bioreactor and its application to the determination of magnesium in serum. Biomed Chrom. 4, 123-127 (1990).
- Ballatori, N., et al. Glutathione dysregulation and the etiology and progression of human diseases. Biol Chem. 390, 191-214 (2009).
- Nauseef, W. M. Detection of superoxide anion and hydrogen peroxide production by cellular NADPH oxidases. Biochim Biophys Acta. 1840, 757-767 (2014).
- Hawkins, C. L., Davies, M. J. Detection and characterisation of radicals in biological materials using EPR methodology. Biochim Biophys Acta. 1840, 708-721 (2014).
- Kettle, A. J., et al. Measuring chlorine bleach in biology and medicine. Biochim Biophys Acta. 1840, 781-793 (2014).
- Carballal, S., Bartesaghi, S., Radi, R. Kinetic and mechanistic considerations to assess the biological fate of peroxynitrite. Biochim Biophys Acta. 1840, 768-780 (2014).
- Meyer, A. J., Dick, T. P. Fluorescent protein-based redox probes. Antioxid Redox Signal. 13, 621-650 (2010).
- Dooley, C. T., et al. Imaging dynamic redox changes in mammalian cells with green fluorescent protein indicators. J Biol Chem. 279, 22284-22293 (2004).
- Malinouski, M., Zhou, Y., Belousov, V. V., Hatfield, D. L., Gladyshev, V. N. Hydrogen peroxide probes directed to different cellular compartments. PloS One. 6, 14564(2011).
- Guzman, J. N., et al. Oxidant stress evoked by pacemaking in dopaminergic neurons is attenuated by DJ-1. Nature. 468, 696-700 (2010).
- Breckwoldt, M. O., et al. Multiparametric optical analysis of mitochondrial redox signals during neuronal physiology and pathology in vivo. Nat Med. 20, 555-560 (2014).
- Wolf, A. M., Nishimaki, K., Kamimura, N., Ohta, S. Real-time monitoring of oxidative stress in live mouse skin. J Invest Dermatol. 134, 1701-1709 (2014).
- Mishina, N. M., et al. Does cellular hydrogen peroxide diffuse or act locally. Antioxid Redox Signal. , (2011).
- Gutscher, M., et al. Real-time imaging of the intracellular glutathione redox potential. Nat Methods. 5, 553-559 (2008).
- Lohman, J. R., Remington, S. J. Development of a family of redox-sensitive green fluorescent protein indicators for use in relatively oxidizing subcellular environments. Biochem. 47, 8678-8688 (2008).
- Schafer, F. Q., Buettner, G. R. Redox environment of the cell as viewed through the redox state of the glutathione disulfide/glutathione couple. Free Radic Bio Med. 30, 1191-1212 (2001).
- Gibbs-Flournoy, E. A., Simmons, S. O., Bromberg, P. A., Dick, T. P., Samet, J. M. Monitoring intracellular redox changes in ozone-exposed airway epithelial cells. Environ Health Perspect. 121, 312(2013).
- Belousov, V. V., et al. Genetically encoded fluorescent indicator for intracellular hydrogen peroxide. Nat Methods. 3, 281-286 (2006).
- Wood, Z. A., Poole, L. B., Karplus, P. A. Peroxiredoxin evolution and the regulation of hydrogen peroxide signaling. Science. 300, 650-653 (2003).
- Sies, H. Role of Metabolic H2O2 Generation REDOX SIGNALING AND OXIDATIVE STRESS. J Biol Chem. 289, 8735-8741 (2014).
- Cheng, W. -Y., et al. Linking oxidative events to inflammatory and adaptive gene expression induced by exposure to an organic particulate matter component. Environ Health Perspect. 120, 267(2012).
- Cheng, W. -Y., et al. An integrated imaging approach to the study of oxidative stress generation by mitochondrial dysfunction in living cells. Environ Health Perspect. , 902-908 (2010).
- Wages, P. A., et al. Role of H 2 O 2 in the oxidative effects of zinc exposure in human airway epithelial cells. Redox Biol. 3, 47-55 (2014).
- Morgan, B., Sobotta, M. C., Dick, T. P. Measuring E GSH and H2O2 with roGFP2-based redox probes. Free Radic Bio Med. 51, 1943-1951 (2011).
- Schwarzländer, M., Dick, T. P., Meyer, A. J., Morgan, B. Dissecting redox biology using fluorescent protein sensors. Antiox Redox Signal. 24, 680-712 (2016).
- Wang, L., Atkinson, R., Arey, J. Formation of 9, 10-phenanthrenequinone by atmospheric gas-phase reactions of phenanthrene. Atmos Environ. 41, 2025-2035 (2007).
- Tantama, M., Hung, Y. P., Yellen, G. Imaging intracellular pH in live cells with a genetically encoded red fluorescent protein sensor. J Am Chem Soc. 133, 10034-10037 (2011).
- Matlashov, M. E., et al. Fluorescent ratiometric pH indicator SypHer2: applications in neuroscience and regenerative biology. Biochim Biophys Acta. 1850, 2318-2328 (2015).
- Hou, J. -T., et al. A highly selective water-soluble optical probe for endogenous peroxynitrite. Chem Commun. 50, 9947-9950 (2014).
- Kojima, H., et al. Detection and imaging of nitric oxide with novel fluorescent indicators: diaminofluoresceins. Anal Chem. 70, 2446-2453 (1998).
- Gabe, Y., Ueno, T., Urano, Y., Kojima, H., Nagano, T. Tunable design strategy for fluorescence probes based on 4-substituted BODIPY chromophore: improvement of highly sensitive fluorescence probe for nitric oxide. Anal Bioanal Chem. 386, 621-626 (2006).
- Garner, A. L., et al. Specific fluorogenic probes for ozone in biological and atmospheric samples. Nat Chem. 1, 316-321 (2009).
- Cheng, W. -Y., Larson, J. M., Samet, J. M. Monitoring intracellular oxidative events using dynamic spectral unmixing microscopy. Methods. 66, 345-352 (2014).
- Wages, P. A., Cheng, W. -Y., Gibbs-Flournoy, E., Samet, J. M. Live-cell imaging approaches for the investigation of xenobiotic-induced oxidant stress. Biochim Biophys Acta. 1860, 2802-2815 (2016).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
