נתמכת solid, נטול חלבון, כפול פוספוליפיד bilayer ממברנות (DLBM) יכולה להיהפך מורכב ודינמי, השומנים nanotube רשתות, יכול לשמש מלמטה למעלה 2D, דגמי רשתית תוך-פלזמית.
מאמר שיטה
היווצרות ספונטנית ו שחלוף של השומנים מלאכותי Nanotube רשתות כמודל מלמטה למעלה על רשתית תוך-פלזמית
במאמר זה
סיכום
תקציר
אנו מציגים שיטה נוחה כדי ליצור מודל מלמטה למעלה מבניים אברון תוך-פלזמית (ER). המודל מורכב צינורות lipidic צפופה, כי הם, מורפולוגיה, דינמיקה, מזכיר את חדר המיון. הרשתות נגזרות פוספוליפיד bilayer זוגי ממברנה תיקונים הקפדה על מצע3 שקוף של2O Al. הדבקה מתווך על ידי Ca2 + במאגר של תאורת הסביבה. דלדול עוקבות של Ca2 + על-ידי BAPTA/EDTA גורמת הכחשה של הקרום, וכתוצאה מכך היווצרות רשת nanotube ליפיד ספונטנית. השיטה כוללת phospholipids ו משטחים microfabricated פשוט היווצרות מודל ER ורק אינו דורש התוספת של חלבונים או באנרגיה הכימית (למשל, GTP או ATP). בניגוד המורפולוגיה תלת-ממד של הסלולר רשתית תוך-פלזמית, המודל הוא דו מימדי (אף על פי מידות nanotube, הגיאומטריה, מבנה, ואת הדינמיקה נשמרים). מודל זה ייחודי במבחנה המיון מורכב רק כמה רכיבים, קל לבנות, ואני יכול להיות שנצפו תחת מיקרוסקופ אור. המבנה שנוצר מעוצב נוספות לקבלת פונקציונליות נוספת, כגון התוספת של חלבונים הקשורים במיון או חלקיקים כדי לחקור תופעות תחבורה בין הצינורות. הרשתות מלאכותי המתוארים כאן אינם מתאימים מודלים מבניים עבור הסלולר המיון, מורפולוגיה אופיינית ייחודי אשר הוכח להיות קשורה תפקידה ביולוגי, ואילו פרטים לגבי היווצרות של התחום צינורי, rearrangements בתוך עדיין לא לגמרי מובנים. נציין כי שיטה זו משתמשת Al2O3 דק-הסרט-מצופה מיקרוסקופ coverslips, אשר זמינים מסחרית אבל דורשים הזמנות מיוחדות. לכן, מומלץ לך גישה למתקן מיקרו-מלאכותית להכנה.
מבוא
המיון מבצעת משימות מכריע התא הביולוגי כולל קיפול חלבונים, בסינתזה השומנים של סידן בתקנה1,2. המורפולוגיה ER הוא מהותי הפונקציות שהיא מבצעת. הוא משלב ערימות מישורי ותחומים צפופה דיינמיק צינורי, אשר ברציפות אינטראקציה עם שלד התא ומבצעת תנועה מתמדת, שחלוף. חלק שיפוץ מבנים מיון עוברים כוללות שינוי רציף בין הסדינים מישורי צינורות, היווצרות שלפוחית מ או פיוז'ן ER לומן, התארכות של צינורות הקיימת מראש, שפופרת הכחשה, fusion ושבירה3. המבנה המיוחד של הרשתות הכרישים הוא שלילי אנרגטית. המסלולים ואת המנגנונים שבאמצעותו המיון יוצר ושומר על שהארגון כמו גם איך זה מתייחס תפקידה הוא לא עוד מובן במלואו4,5.
זה ידוע כי המיון בתקלות כאשר הוא מאבד את מצב homeostatic שלו, וכתוצאה מכך ER מתח, מחלה הנגרמת על ידי עלייה סינתזה של חלבון, הצטברות של חלבונים misfolded, או שינויי Ca2 + ואיזון חמצוני. ER סטרס בתורו גורם דפורמציה של המורפולוגיה הטבעי של אברון, במיוחד על ידי מטריד את רשת הארגון6,7. כתגובה, התא מפעיל מנגנון תיקון כדי להחזיר למצב homeostatic. כשל תיקון יכול להוביל תא ER-induced אפופטוזיס, אשר תורמת מספר מחלות מטבוליות ניווניות כגון מחלת אלצהיימר, סוכרת סוג 2, מחלת פרקינסון, נוירודגנרטיביות ועוד מספר7, 8. המחקר הנוכחי מטרות הארגון של רשתות מיון צינורי, מספר מחקרים מתמקדים לשחזר את חדר המיון במבחנה2. קיימים מספר מודלים2,9,10 מחייבים חלבונים ליזום, לשמור על קרום עקמומיות3,11 ולעזור את אברון להגיע צורתו. . בבירור, מערכות מודל זה מראה כמה מן התכונות העיקריות מבניים וארגוניים של המיון ולספק גישה ללימודים מתקדמים ניסיוני הן ביקוש גדול.
אנו מציגים כאן נהלי ההכנה של חלבון/כימי נתיישב, אנרגיה חופשית, דינמי במבחנה מודל המיון, מתן פלטפורמה בסיסית ללמוד מורפולוגיה ER ו המשויכים פונקציות4. בשיטה זו, מודל ER מפוברק עם גישה מלמטה למעלה באמצעות מספר רכיבים בלבד, בו המולקולות של עניין ניתן לשלב להוספת המורכבות. הרשת מייצגת מבנה אר ואת הדינמיקה. יתר על כן, השינוי הפיך בין קרום מישוריים הצינורות, היווצרות שלפוחית צינורות, שפופרת פיוז'ן, הזזה, הכחשה כל ניתן לעקוב אחר. בנוסף למנה כמודל מלמטה למעלה עבור המיון שהיישום הבין תאית, המסלול השומנים לרשתות nanotube שמתואר פרוטוקול זה יכול להיות ישימים עבור החוקרים ללמוד הרכבה עצמית, nanofluidics, מולקולה בודדת, קולואיד תחבורה תופעות, ס שלושה קמפוסים: זרימה, נלווים אחרים שדות. אבני הבניין מולקולרית רק בשימוש בשיטה שלנו הם פוספוליפידים. הפרוטוקול מחייב עבודת מעבדה קטנה וציוד בסיסי והוא נגיש עבור שילוב של אלמנטים נוספים.
פרוטוקול
1. הכנת פוספוליפיד שלפוחית השעיה
הערה: עבור כל החומרים התייחס בתור "נקי" של פרוטוקול זה, ביסודיות לשטוף אותם עם אלכוהול איזופרופיל ואחריו מים יונים את מייבשת אותם עם חנקן. שימו לב כי לא לבצע טיפול של סובסטרטים זכוכית עם מחמצן חזק סוכנים חומצי (פיראניה פתרון), אשר בדרך כלל מיושמת הכנת פרוטוקולים עבור סרטים השומנים הנתמכות על מצעים מוצק, אל2O3-מצופה נשאים.
- המקום בבקבוקון סיבוב למטה או הפוכה בצורת אגס זכוכית נקי 10 מ"ל: סויה L-α phosphatidyl כולין (PC, 69% w/w), 1,2-dioleoyl-sn-glycero-3-phosphoethanolamine (סמים, 30% w/w), ו fluorophore מצומדת השומנים של בחירה [למשל, טקסס אדום 1, 2 - dihexadecanoyl-sn-glycero-3-phosphoethanolamine triethylammonium מלח (TR-DHPE, 1% w/w)] ב כלורופורם; עבור סכום כולל של 3000 µg של ליפידים, µL 300 של סם הרדמה, וכתוצאה מכך ריכוז סופי של 10 מ"ג/מ"ל.
הערה: השתמש נקי, זכוכית, מזרקים גז חזק עם בוכנות טפלון בעת טיפול תרכובות המכילות כלורופורם.
התראה: כלורופורם רעיל ולא יציבה מאוד, תמיד צריך להיות מטופל ברדס fume עם ציוד מגן אישי המשויך. - להתחבר את הבקבוק. את המאדה, עמדת עם הטיה של 45°, סובב ב rpm 24 בתוך אמבט מים ב 23 מעלות צלזיוס במשך 6 שעות עם לחץ אוויר מופחת לאט ו להסיר לחלוטין את הכלורופורם. התחל צמצום הזכות לחץ לאחר הסיבוב על ידי צעדים של kPa 20 כל 2 דקות עד שהוא מגיע kPa 20 (טנדר של גוה של 150, 80% ואקום).
הערה: היווצרות של סרט השומנים הומוגנית של עובי אחיד בתוך הכלי הכנה היא הדרישה החשובה ביותר עבור ההליך rotavap. ההכנות השומנים רגישים מהירות סיבוב, שינויי לחץ מהיר וערך הלחץ הסופי; לכן, הלכתם בקפדנות אחר הצעדים להפחתת איטי, כמו גם את מהירות לחץ וסיבוב של הקצה. מקם את הבקבוק עם הטיה של 45° כדי להבטיח העוגה השומנים יבשים נוצר באופן שווה כמו סרט על הקיר של הבקבוק. מהר מדי של סיבוב הפניות כדי turbulences ואיטי מדי של סיבוב מוביל (בשל כוח המשיכה) הצטברות שכבה עבה של נוזל בחלק התחתון של הבקבוק. במהלך הלילה שלאחר מכן נפיחות תהליך, ליפופרוטאין מאוד-הומוגניים המוני המיוצר שאינו מגיב היטב. כדי השלב הסופי sonication, שברים וכתוצאה מכך הם יצירות שונות. לחץ וזמן בטווח שצוין בהשיטה מבטיחה desolvation איטי. עם הכלורופורם כמו הממס, גם מהירה של ירידה בלחץ יירגע את התערובת, וכתוצאה מכך צמיגות מוגברת ויצירת סרט צבירה, לא אחיד. תקופת זמן של 6 שעות מומלץ כדי להסיר את הממס ככל האפשר, המחיצות בממיסים אורגניים לתוך החומר השומנים על התייבשות. - לאחר 6 שעות, עוצרים את הסיבוב, להגביר את לחץ האוויר שוב, בהדרגה, על-ידי שלבים של kPa 20 כל 2 דקות עד שהגיע 100 kPa. הסר את הבקבוק המאדה ולהוסיף 3 מ"ל של PBS µL 30 של גליצרול. מערבולת בעדינות את הבקבוק כדי להמיס את גליצרול. השתמש של פקק זכוכית לאוויר כדי לאטום את הבקבוקון המכיל ליפידים.
הערה: גליצרול משמש כדי למנוע את התייבשות מלאה של הסרט השומנים ומאפשר bilayer ההפרדה12. זה צריך להיות מחומם לפני השימוש כדי להקטין את צמיגות שלה, אשר מקלה על הטיפול של מתחם זה. גליצרול ומחוממת עדיין לא מיד מערבבים עם המאגר PBS. מתערבל עדין נדרש עד התפרקה לחלוטין גליצרול. - אחסן את הבקבוק במקרר ב 4 ° C לילה על התייבשות ונפיחות של הסרטים השומנים.
- למחרת, sonicate ליפידים עם אמבט מים אולטראסוניות בטמפרטורת החדר (RT, ~ 21 ° C), בתדר 35 קילו-הרץ עד להשגת השעיה השומנים אחיד, מעט עכורים.
הערה: Sonication יכול לקחת סביב 10-30 ס' sonication ממושך (~ 1 דקות) מייצר חום והוא מזיקה היווצרות שלפוחית. - צעדים תשואה 1.1-1.5 השעיה המכיל שני סוגי מבנים vesicular: multilamellar שלפוחית (קמפנילה MLV) ושלפוחיות unilamellar ענק (בוס) (איור 1א'-1F).
- לאחסון, לחלק את השומנים ההשעיה 100 aliquots µL, באמצעות סך של 30 microcentrifuge צינורות, ולאחסן אותם במקפיא ב-20 ° C.
הערה: פלאש הקפאה בחנקן נוזלי הוא לא הכרחי, לא בשימוש לפני האחסון. ניתן להשהות את הפרוטוקול פה. עוזב תרחיפי ליפידים במקרר 4 ° C עבור ממושך פעמים פירוק השומנים גורם, אשר משפיע על הרכב ממברנה.
2. הכנת מצעים
הערה: הפרוטוקול הבא מתבצע במלון חדר נקי מסווג כ- 8 ISO במפרטי תקן ISO 14644-1. התצהיר שכבות אטומיות בודדות (אלד) משמש כדי לפברק Al2O3 סובסטרטים. הפרמטרים שצוינו תהליך תלויי-כלי, עשוי להשתנות בין מודלים שונים של ציוד. הם יכולים לשמש כפרמטרים הראשונית כדי לפתח את התהליך.
- הגדר את הטמפרטורה של הכור אלד 200 מעלות צלזיוס.
- לטעון את משטחי זכוכית (למשל, coverslips זכוכית דקה) אל החדר מדגם יחד עם רקיק סיליקון, אשר ישמשו מאוחר יותר כמו משטח ייחוס לקביעת עובי של העדות על-ידי ellipsometry.
הערה: זכוכית סובסטרטים היו בשימוש--התקנים ולא היו הממס-ניקה לפני התצהיר. הם היו רק ריקון עם גז חנקן להסיר חלקיקים. - לפנות לתא הטעינה 400 הרשות הפלסטינית (3 טנדר של גוה של), להעביר את הדגימות אל החדר התגובה העיקרית לפנות את זה ל-200 הפלסטינית.
הערה: הטמפרטורה של הכור יש לשמור 200 ° C עבור התצהיר נאותה. תנודות הטמפרטורה לאחר טעינה הדגימה ולכן חייב להיות equilibrated לפני ביצוע התצהיר. קאמרית הלחץ מוגדר להיות גבוה יותר כור הלחץ כדי למנוע כל מבשרי להתפשט מחוץ לחדר. - התחל הפקדת הסרט אטומי. מחזור אחד מורכב חשיפה אלומיניום חיבור דופק 150 מילישניות, ואחריו הטיהור s 1, ולאחר מכן, עם חשיפה2O H של 200 ms משך ואחריו הטיהור s 1.
הערה: כל ההגדרות כולל קאמרית הלחץ בכור, אורך מחזורי, ועל הטיהורים הן אוטומטיות כדי להשיג שיעור מוגדר של התצהיר. פרמטרים אלה עשויים להשתנות בין מודלים שונים של ציוד. המתכונים מוגדרות מראש הינם לעיתים קרובות שהוכנו על ידי הספק או הכלי האחראי לחדר הנקי, לידיעת המשתמש כמו עובי הסרט ההפקדות בכל יחידת זמן. - כדי להגיע 10 nm של2O3 על המצע, חזור על התהליך עבור 100 מחזורים. מספר מחזורים תלוי בקצב התצהיר, אשר עשוי להשתנות בין מתכונים שונים או ציוד.
- כדי להסיר את הדגימות הכור, הראשון פתח התא עד הלחץ שלה מגיע הלחץ האטמוספרי, ואז להסיר את הדגימות.
- לאחסן את הדגימות במיכלים אוויר חזק ב RT עד השימוש.
הערה: אין יותר ניקוי מומלץ לפני השימוש. ניתן להשהות את הפרוטוקול פה.
הערה: הדגימות אמור אידיאלי לשמש מיד לאחר התצהיר. האחסון של האופטימלית דורשת מיקום על המשטחים בתוך נושאות וופל פוליפרופילן, ואחריו כעוטפת נושאות בשקיות פלסטיק תואמת-חדר נקי, אשר יבוצע חנקן-ריקון לפני איטום ואקום. המטרה היא למנוע חשיפת פני השטח והאוויר נישאים מזהמים. במידת הצורך, המשטחים ניתן לשמור במיכלים אוויר חזק ב RT מקסימום 5 ימים. אחסון ארוך אינו מומלץ. למשתמשים אין גישה נוחה חדר נקי בקרבת מקום, ו לרכוש או להשיג את המשטחים מחו ל, מחדש מחמצן את מצעים על-ידי טיפול פלזמה או האוזון חמצן עשוי להיות פתרון חלופי13.
3. שינוי מולקולרי פוספוליפיד סרטים לרשתות צינורי
- להפשיר את השומנים ההשעיה ולהעביר droplet µL 4 של השעיה על גבי שקופיות מיקרוסקופ זכוכית נקי/coverslip.
- וכשתתחילי ה-droplet כעשרים דקות. ה-droplet תתמוטט לתוך סרט עגול שטוח של ליפידים לאחר לייבוש, הגלויה לעין.
- נתרענן הסרט ליפיד עם 1 מ"ל של מאגר HEPES (ראה טבלה של חומרים) למשך 3 דקות.
הערה: הנפח של התייבשות מאגר משפיעה הצפיפות של שלפוחית ההשעיה (המספר של שלפוחית לכל יחידת נפח), אשר לאחר מכן הועבר לחדר התצפית. בהתאם לנפח של תא תצפית וצפיפות שלפוחית הרצוי, ניתן לכוונן את עוצמת הקול של התייבשות 0.5-1 מ ל. שקופיות בורוסיליקט נקי נוטים לתמוך טיפות של כמה מאות microliters עד 1.5 mL ללא בעיות. מאז coverslip לא צריך להתרגש, זה לא לגרום בעיה טכנית. על משטחים יותר הידרופובי, כגון SU-8 פולימר מצופה שקופיות, ניתן אפילו 1.5 mL הופקדו12.
הערה: שומנים צריך להיות טרי מוכן, כמו חשיפה של הסרט השומנים ולמיומנות במשך יותר מ 20 דקות ב RT שמוביל אידוי מאגר והתייבשות חלקית של השלפוחיות המוגלתיות בעבר rehydrated, כשבסופו לקוי של הגדרת הרכב. - להכין לחדר התצפית: כדי לאפשר מאגר exchange באמצעות פיפטה אוטומטי, אשר נדרש ליזום השינוי מיון, חדר התצפית עם גג פתוח היה בשימוש. החדר הזה מורכב מסגרת polydimethylsiloxane (PDMS) עם ממדים 1.5 x 1.5 x 0.5 ס מ, דבקה אל coverslip3 להפקיד2O Al. ערכה לשכת תצפית הנטען מיוצג באיור 1G. השלבים הבאים בוצעו לפברק את המסגרת PDMS ולהרכיב לחדר התצפית:
- הכן פתרון קו על ידי ערבוב 100 גרם של קו עם 100 מ של אלכוהול איזופרופיל בתוך באמבט קרח. מערבבים לקבלת 10 h או יותר עד קו היא התפרקה לחלוטין באמצעות פגים מגנטי מערבבים בצלחת.
התראה: KOH פתרון שמשחית והוא יכול להוביל עור ברנס, אז תמיד להתמודד עם ציוד מגן אישי מתאים.
הערה: המסיסות של קו ב אלכוהול איזופרופיל אינה גבוהה באותה מידה כמו מים. הפירוק היא אקסותרמית. ריסוק כדורי KOH לפני המסת, ערבוב מתמשך, מומלץ. - להטביע כוס, צלחת פטרי (d = 6 ס"מ) בתוך תמיסת KOH ב RT ולשמור אותו למשך הלילה.
- למחרת, להסיר את צלחת זכוכית הפתרון לטבול אותו במיכל עם מים יונים במשך 5 דקות, לשטוף אותו מספר פעמים עם מים, למקם אותו בתוך תנור ייבוש ב 80 ° C עבור 1 ה מכה את פני השטח בקצרה עם זרם של חנקן כדי להבטיח את החלק הזה icles יוסרו.
- Passivate פני השטח ולמנוע התחברות PDMS, העברה µL 200 של dimethyldichlorosilane עם מזרק פלסטיק לתוך מיכל פלסטיק נקי כמו סירה ניפוח.
- אחסן את הזכוכית, צלחת פטרי יחד עם silane עבור 1 h desiccator פונו (ואקום נמוך, ~ 20 kPa).
התראה: Dimethyldichlorosilane הוא רעיל, תמיד צריך להיות מטופל ברדס fume עם ציוד מגן אישי המשויך. - להמתין 15 דקות לפני איסוף הפטרי על מנת האדים dimethyldichlorosilane הנותרים להתפוגג. הפטרי עכשיו silanized, השטח הידרופובי.
הערה: דרך מהירה כדי לבדוק את ההצלחה של שלב זה היא לשים טיפונת מים על גבי silanized צלחת פטרי. זווית הקשר של ה-droplet עם השטח חייבים להגדיל בעליל בהשוואה זכוכית ללא טיפול. - במיכל 250 מ ל פלסטיק (שקוף כוס פלסטיק ומחונך החבילה), מערבבים 10 גרם של סיליקון elastomer הבסיס עם 1g של סיליקון elastomer ריפוי סוכן (10:1). מערבבים בעזרת מרית פלסטיק קדירות/פלסטיק במשך 5 דקות.
הערה: בועות אוויר נוצרות על בחישה, PDMS ייראה חיוור-לבן. - וכשתתחילי את התערובת עד דגה ב kPa < 20 עד כל הרחבת בועות אוויר קרסו (ואקום גבוה יותר מאיץ את התהליך). שופכים את התערובת degassed לתוך silanized צלחת פטרי.
- לרפא-65 מעלות צלזיוס במשך שעתיים בתנור.
הערה: זה אפשרי להכפיל את מהירות ריפוי על ידי הגדלת לטמפרטורה > 95 ° C. הטמפרטורה ריפוי הגוברת גורמת לגידול נוקשות של החומר. - לקרר הפטרי מלא את PDMS נרפא כדי RT ולהסיר את המתים PDMS עם מרית.
- עם איזמל, וחותכים את המסגרת הממדים ואת הגיאומטריה המתאים לפתיחת זמינים בשלב מיקרוסקופ. מידות של 1.5 (אורך) x 1.5 (רוחב) x 0.5 ס מ (גובה) מתאימים setups רוב.
- להביא שהצד החלק (הצד התחתון שהיה בקשר עם הפטרי) של PDMS מסגרת במגע עם הצד הפעיל של פני השטח בו שוכן באל2O3 הסרט, בעדינות להפעיל לחץ כדי לדחוף את המסגרת ואת משטח אחד נגד השני כדי להפוך אותם לדבוק.
הערה: הידבקות בין מסגרת PDMS Al2O3 המצע הוא חלש. הנוכחות של בועות אוויר על הממשק קשר עלול לגרום דה-קובץ מצורף, וכתוצאה מכך לדליפת מאגר ותוכן קשור. המסגרת PDMS יכול לשמש מספר פעמים אם מיד לאחר, לפני כל שימוש זה שוטפים עם אלכוהול איזופרופיל, ואחריו שטיפה במים DI ו האפרקאי עם חנקן. גם ניתן להשתמש שוב את silanized פטרי.
- הכן פתרון קו על ידי ערבוב 100 גרם של קו עם 100 מ של אלכוהול איזופרופיל בתוך באמבט קרח. מערבבים לקבלת 10 h או יותר עד קו היא התפרקה לחלוטין באמצעות פגים מגנטי מערבבים בצלחת.
- למלא את התא תצפית עם Ca2 +- HEPES מאגר (ראה טבלה של חומרים).
הערה: השטח אמור לשמש מיד לאחר unsealing את החבילה. במגע עם אוויר מוביל ספיחה של מזהמים, אשר מפחית את הפעילות של פני השטח בהדרגה. החדר צריך להיות מלא עם מאגר מיד לאחר ההרכבה. אל תמלא את עוצמת הקול של החדר כולו כדי לאפשר תוספת של ליפידים rehydrated בשלב שלאחר מכן. - מקם את התא לבמה מיקרוסקופ קונפוקלי. העברת את החומר ולמיומנות השומנים, עכשיו השעיה המכיל שלפוחית ענקית, אל החדר עם פלסטיק פסטר פיפטה (איור 1א'-1 G).
- לחכות 10-20 דקות כדי לתת השלפוחיות המוגלתיות מקפידים על גבי המצע והתפשטה על פני השטח (איור 1H-1J).
הערה: המריחה מתחיל מיד לאחר הפקדת שומנים על פני השטח. הקצב של הפצת אולי מעט משתנים בהתאם הרכב השומנים, Al2O3 התצהיר טכניקה (הליגה נגד השמצה, בתצהיר אדים RF sputtering, כימיה וכד'),רעננות של סובסטרט, וכן ריכוז הקטיון כלט מאגר. ודא כי מאגר exchange מבוצע לפני קריעה של המריחה טלאים14. - לאחר התבוננות כפולות אחדות השומנים, לאט להסיר המאגר הסביבה באמצעות פיפטה אוטומטית, כך רק סרט דק מאגר נשאר בתחתית.
הערה: הסרה מהירה של מאגר perturbs המבנים השומנים על פני השטח. - להמשיך ההחלפה מאגר מקיף על ידי מילוי באיטיות לחדר התצפית עם מאגר chelator-HEPES (ראה טבלה של חומרים) באמצעות פיפטה אוטומטית (איור 1K).
הערה: תוספת פתאומי של מאגר perturbs המבנים השומנים על פני השטח. - שלב סופי זה מניב רשתות nanotubular דינמי, נוצרו כתוצאה chelator-induced depinning של משיכת DLBM עד קמפנילה MLV4 (L-1Yאיור 1).
4. מיקרוסקופ תצפית
- לרכוש התמונות עם לייזר הפוכה מיקרוסקופ קונפוקלי באמצעות 40 X שמן (1.3 NA) טבילה המטרה עם תדירות סריקה של 400 Hz. להעסיק סורק מקור לייזר אור לבן כדי לעורר את DHPE האדום טקסס-595 nm. לאסוף את הפליטה של 605 ל- 700 nm באמצעות גלאי הפוטונים היברידית.
הערה: לחלופין, מיקרוסקופ epi-זריחה יכול לשמש עבור הדמיה. בהתאם מקורות אור הזמינים, בחר המספר המשלים של ליפיד מתאים-צבע.
תוצאות
השומנים ההשעיה שהושג בשלב 1 של הפרוטוקול ומשמש במהלך הניסויים מכיל שני סוגים עיקריים של שלפוחית: MLVs ובסדר, פרנקי. איור 1 A-1F מראה micrographs קונאפוקלית של השלפוחיות המוגלתיות במדגם הראשונית נבנה ב- 3D סריקת לייזר. איור 1 A-1_C מראה של קמפנילה MLV (השומנים פיקדון) xyz, xz ולאחר yz ימאהה מטוסים, בהתאמה. איור 1 D-1F מראה דומה נופי שלפוחית unilamellar ענק (בוס). החלק הפנימי של האנשים שנגדם, שחסרה multilamellarity, הוא חלול; לכן, החומר השומנים להפצת מוגבל באופן משמעותי. לכן, מאגרי השומנים שימושי רק שיטה זו הן MLVs.
כאשר השומנים ההשעיה הועבר לחדר התצפית המכיל Ca2 +- HEPES המאגר (איור 1G), MLVs (איור 1A-1_C) מתחילים להתיישב על פני3 2O Al. לאחר יצירת קשר, השלפוחיות המוגלתיות לדבוק פני השטח, קרום bilayer השומנים במול זוגי עגול (DLBM) מתחיל להתפשט מכל כל קמפנילה MLV על התמיכה מוצק (איור 1H-1J). קמפנילה MLV משמש מאגר המספק ליפידים DLBM הרחבת ברציפות. ממברנה דיסטלי bilayer (עליון), ביחס תמיכה מוצקה, מחובר קרום proximal bilayer (נמוך יותר) לאורך ההיקף של הקצה מעגלית, ביצוע תנועה מתגלגל (איור 1אני). שני bilayers ממוקמות ביובש אחד על השני, יש רק דקה בסרט נוזלי אנקפסולציה ביניהם. בזמן המריחה, קרום proximal ברציפות לאנאפוליס השטח תמיכה מתחת, בעוד קרום דיסטלי רוחבית עשה בקצוות שפת ממברנה proximal מתרחבת. הפצת DLBM מתווך על ידי Ca2 +, אשר פועל כסוכן fusogenic בין קבוצות ראש השומנים מן קרום הפרוקסימלית ומצע מוצק4.
אם המריחה ממשיכה לתקופות ממושכות, הקרום המתח עולה, שמוביל יתבקע (איור 2א ו- 2B). אחרי זה הצבע, יכולות ממברנה הכחשה, אשר הכרחי ליצירת המבנה הצינורי ER, כבר לא להתעורר. לכן, חשוב לזהות קרע בקרום. מאז fluorescently לוחיות ההסבר ליפידים בניסויים שלנו, קריעה יכול להיות ישירות שנצפו. מחוון מפתח של פקיעת הוא ירידה משמעותית בעוצמת זריחה ב אזור קרע (איור 2א ו- 2B)14. קריעה הוא תוצאה של מתח מוגבר, היווצרות נקבובית עוקבות ממברנה דיסטלי. תחת מיקרוסקופ פלואורסצנטי, האזורים קרע ולכן תערוכת חצי פליטה האינטנסיביות (bilayer proximal יחיד) של אזורים unruptured (bilayer כפול)14 (איור 2B). במהלך היווצרות נקבובית, החומר הממברנה, אשר בתחילה שהתה האזורים קרע, נודד לקצות מריחה התיקון. זה בתורו גורם לצמיחה של השטח הכולל תיקון. לכן, ניתן גם לצפות על ההתרחבות המהירה של קו המתאר של התיקון מעגלית במהלך קריעה.
כדי למנוע צמיחה נרחב המוביל שבר המדבקות, מיד לאחר תיקון מעגלי באזור מגיע ל- 100-200 מיקרומטר, Ca2 +- HEPES המאגר הוא להסיר בעדינות עם פיפטה אוטומטי עד דקה בסרט שרידי נוזלי על פני השטח. המאגר Chelator-HEPES מכן יתווסף בעדינות אל התא ליזום את התנצלות (איור 1K). להתייבשות מוחלטת של המדגם (איור 2C) או exchange מהירה של מאגרי (איור 2D ו- 2E) גורמת להפרעה, קריעה או דפורמציה של המדבקות. התוספת של chelators בהדרגה מסיר Ca2 + מן המרחב בין פני הממברנה. המאגר Chelator-HEPES ניגשת בהדרגה את החלל בין-bilayer-המצע, החל מן הפריפריה של תיקון קרום של השומנים. לכן, ההסרה של האתרים הצמדה מתחיל מהקצוות של התיקון מעגלית ומפיץ פנימה (איור 1K-1Q). כתוצאה depinning, קרום השומנים מתחיל ניתוק ומשכו מ פנימה הקצוות, מתקדמת לכיוון קמפנילה MLV במרכז. תהליך הכחשה מוביל ממשק חדש של דינמי המתפתח רשתות הכרישים lipidic4 (L-1Yאיור 1). האזורים מתמיד של הצמדה, אשר אינם מאפשרים את הממברנה כדי לנתק לגמרי, להישאר על לטבלאות משטח, nucleate, המוביל ברשת זמן רב, מסועף של צינוריות. (איור 1L-1Y). רציף בטל הצמדה ו עוד התנצלות של צינוריות השומנים הם נצפו במשך הזמן כתוצאה של תהליך הדרגתי קלאציה. Coarsening הזה, סידורם מחדש של הענפים רשת ממלא תפקיד מרכזי בהתנהגות דינמי של הרשתות צינורי, המזכירים בטבעם את המיון חלקה.
איור 1 L-1Y מציגה את micrographs של הרשתות nanotube שהושג בפרוטוקול. איור 1 L היא שתקריב של האזור איור 1מ' מסומן במסגרת לבנה. האזורים אדום בוהק רציפה ב איור 1L ו- 1 מ' הן חלק retracting DLBM (מסומנים באמצעות קו מקווקו כחול באיור 1מ'). Micrograph של רשת צינורי ב איור 1N ו- 1O הוא הפוך כדי להגדיל את החדות. איור 1 P ו- 1Q מתארת הפחתת הצפיפות הכרישים על אזור ממברנה במשך 3 שעות, 20 דקות. הירידה של צפיפות צינורי מתרחשת עקב depinning הדרגתית ואחריה הכחשה של DLBM השטח על פני תקופת זמן הניסוי. במשך הזמן, מספר הנקודות שוחרר מן הצמדה עליות, המוביל אל rearrangements וירידה של האזור מכוסה על ידי צינורות (איור 1P ו- 1Q). Rearrangements צינורי המונעים על ידי משטח אנרגיה חופשית וצמצום של שפופרת הנאנו השומנים מושעה בין שתי נקודות קבועות. . זה מבוססת היטב כי הדרך היעילה ביותר של מזעור האנרגיה משטח של שפופרת הנאנו היא להפחית את אורך15. לכן, כאשר האזורים fusogenic, אשר בתחילה להכיל הנאנו על פני השטח, הם מוצמדים בטל, הנאנו שקופית, לארגן את עצמם באופן ספונטני, אימוץ באורך מינימלי. אלה rearrangements לגרום כיסוי מופחתת בהדרגה של פני השטח על ידי הנאנו (איור 1P ו- 1Q).
אנחנו לא יכולים לדמיין Ca2 +-מתווכת נקודות הצמדה, אבל אנו להקים את מיקומם כנקודות שבו יש צינורות פונה מסוף או חדה. פניות חדות מכונים V-צמתי15 או מפנה-נקודות בגלל משמרת פתאומי בכיוון של היישור של הצינור (החצים הירוקים ב איור 1R ו- 1 X). מובילים מייצג הסופית של הרכבת התחתית, אשר מונעת את הצינור היציבה (כתום חצים איור 1X). במהלך ארגון מחדש, פריסה אנרגטית חיובית של צינורות מזוהה "Y-צמתים" או "3-דרך צמתים", מופיעים. לצומת Y מחבר צינורות 3 עם-120° מעלות בין כל שפופרת, היכן ניתן לאבטח את אורך צינור הכולל הקצר ביותר. Y-צמתים, אשר לא ניחנת של מובילים, במקום ממוקמות בין צינוריות מרובים, אינה מוצמדת. זהו הסוג היחיד Y-צומת יכולה לבצע הזזה (חיצים כחולים, איור 1R). כפי שמוצג באיור 1R ו- 1S, הזזה של Y-צומת לאורך מובילה לצומת מאוד יציבה על היווצרות שני בודדים Y-צמתים (חיצים כחולים איור 1S). הקו הלבן מקווקו נקודות המגע המוצגים על גבי איור 1S מייצגת את קווי המתאר של השבר רשת צינורי איור 1R. שבריר של Y-צמתי בעל קצה מסופי (חץ צהוב איור 1T) אשר, במשך הזמן, בסופו של דבר לסגת (איור 1U). הטרנספורמציה של V-צומת יחיד, הצינור ישר על ידי depinning של נקודת ההצטלבות של מקטעי קו שני על ידי ביטול של אחד הצינורות ויוצרים צורת V יכול להיות שנצפו איור 1V ו 1W , איור 1X ו- 1Y, בהתאמה.
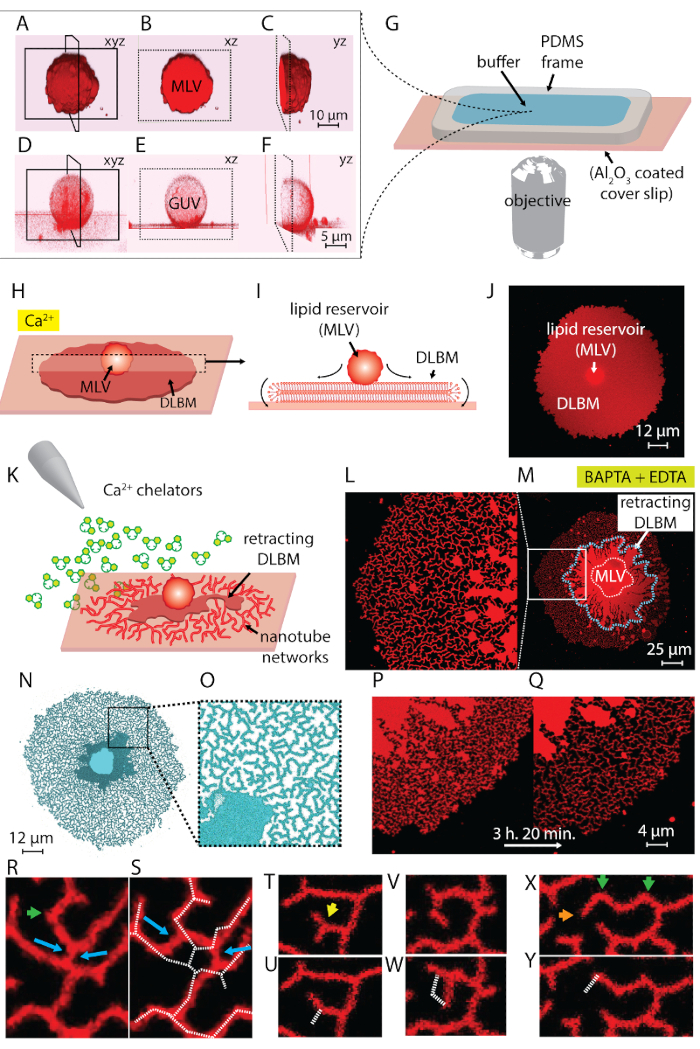
איור 1 : טרנספורמציה של השומנים פיקדונות לרשתות צינורי, כמו אי. אר. (A-F) לייזר סורק micrographs קונאפוקלית של השלפוחיות המוגלתיות בדוגמת הראשונית, נבנה ב- 3D. (א-ג) שלפוחית multilamellar שומנים בדם (קמפנילה MLV, השומנים פיקדון) ב xyz, xz וב yz ימאהה מטוסים, בהתאמה. (D-F) נופים דומים של שלפוחית unilamellar ענק (בוס). החלק הפנימי של האנשים שנגדם הוא חלול, מה שהופך את החומר השומנים להפצת מוגבל באופן משמעותי. המאגרים השומנים שימושי עבור שיטה זו ולכן הם MLVs-(G) איור של תא תצפית רכוב על מיקרוסקופ הפוכה שעליו מופקדים על מאגר ושומנים. התא מורכב PDMS מסגרת דבקה אל coverslip3 מצופה2O Al, מתן של אמצעי אחסון פתוח העליון. (H-J) איור של התופעה מתפשטת של קמפנילה MLV בנוכחות Ca2 +. (ח) על קשר עם2O3, קמפנילה MLV מתפשט באופן ספונטני בצורת עגול, כפול השומנים bilayer הממברנה (DLBM). (I) להציג צד סכמטי של DLBM במישור xz, בהם פריפריה לבצע תנועה מתגלגל. קמפנילה MLV (d = 5-15 מיקרומטר) ו DLBM (עובי = 10 ננומטר) לא נמשכים לקנה המידה. (י) מיקרוסקופ קונפוקלי של DLBM מתפשטת מתצוגה-העליון. (K) מתאר את השלב העיקרי של פרוטוקול זה, שבו חילופי המאגר כדי אחד המכיל Ca2 + chelating סוכנים, עיכוב המריחה, לגרום משיכת DLBM קמפנילה MLV, שמוביל היווצרות ליפיד הנאנו. (L-Y) Micrographs של הרשתות nanotube שהושג עם השיטה המתוארת. (יב) צילום מקרוב של האזור (ז) מסומן בתוך מסגרת. האזורים אדום בוהק רציפה ב (L ו- M) מייצגים את DLBM (גם מסומנים באמצעות קו מקווקו כחול מ'). Micrograph של רשת צינורי (N, O) הוא הפוך כדי להגדיל את החדות. (P, Q) תיאור של הפחתת הצפיפות הכרישים על אזור ממברנה במהלך סידור מחדש צינורי נציג 3 h ו- 20 דקות (R-Y). (R ו S) הזזה, (T ו- U) מעבר של Y-צומת לצומת-V על ידי משיכת אחד מובילים, ו (V, W) בטל הצמדה של נקודת מפנה, וכתוצאה מכך מיגור של V-צומת. (X ו- Y) הכחשה של מובילים. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
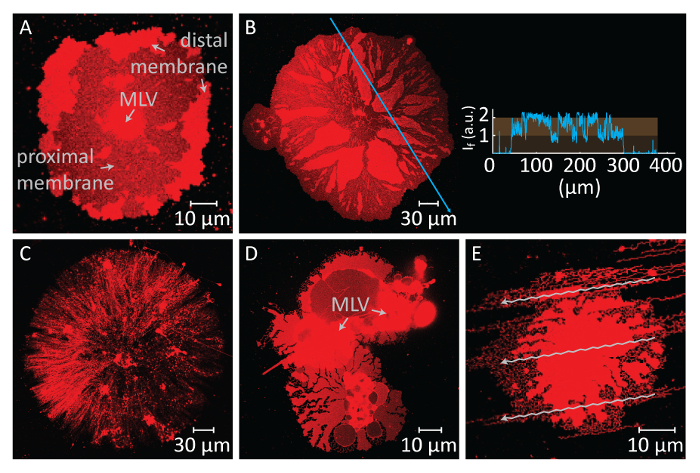
איור 2 : תוצאות שליליות פוטנציאליות. (A ו- B) קריעה של קרום דיסטלי עקב רב זמן המתנה לפני ההחלפה של מאגרי. האזורים קרע, שבו קרום proximal הופך לגלוי, מופיעים אזורים כהים לעומת האזורים unruptured ממברנה דיסטלי. שיבוץ לוח ב' מציג את עוצמת האור לאורך החץ הכחול micrograph. האינטנסיביות של האזורים מקרע של הקרום (proximal בודד bilayer הופך לגלוי) מקביל חצי האינטנסיביות של קרום unruptured (דיסטלי זוגית bilayer). (ג) הופעת כתם יבש השומנים ולהעלמת ההסרה של כל נוזל מן החדר תצפית. (E ו- D) הפרעה של הקרום על ידי exchange מהירה של מאגרי באמצעות פיפטה אוטומטית. (ד'), קמפנילה MLV יש לפצל MLVs 2, המוביל אל כתם שאינו עגול, מעוותים השומנים. ב- (E), התבנית של הזרם (חיצים), שנוצרו על ידי הזרקה חזקה מאגר chelator-HEPES, משתקף על מבנה הממברנה tubulated. אנא לחץ כאן כדי להציג גירסה גדולה יותר של הדמות הזאת.
דיון
בדיון הבא, מתוארים שלבים קריטיים, שינויים אפשריים, מגבלות של הפרוטוקול. השלב הקריטי הראשון הוא הרכבה נכונה של החדר תצפית, בהתחשב בכך הידבקות של המסגרת PDMS אל פני השטח3 2O Al היא ביסודה החלשה. במקרה שבו המסגרת לא לדבוק המצע כראוי, התוכן ידלוף מן החדר תצפית, הניסוי יבוא לקיפאון. הגורמים העיקריים המעכבים הנכון איטום של פני השטח, מסגרת 1) חוסר ניקוי יסודי של המסגרת PDMS (שימוש חוזר), 2) אוויר בבועות שחלפו מעת לעת לקבל לכודים בין מסגרת המצע. אמור לשמש מסגרת PDMS שזה עתה מוכנים או נקי ביסודיות. המסגרת צריך לשטוף לפני וגם אחרי כל שימוש, עם אלכוהול איזופרופיל, ואחריו שטיפה במים DI ו האפרקאי עם חנקן. Al2O3 המשטחים אינם מצריכים כל ניקוי מוקדמת, מאז הם מפוברק בסביבת חדר נקי, המשיך במיכלים אטומים עד השימוש. בשל אופיו amphoteric של2O3, זה אסור לחשוף לפתרונות חזק חומצי או בסיסי. עיצובים אחרים עבור תא תצפית יכול להיות מועסק, בהתאם נגישות של ההתקנה בודדים. תכונות חשובות של החדר הזה הם גישה חופשית לדגימת הנוזל העליון פתוח, את inertness של החומר מסגרת ביחס דגימות והפתרונות בשימוש. מידות החדר הם גם גורם משמעותי, הם צריכים להכיל אמצעי אחסון של 0.5 עד 1 מ"ל. מאז המשטחים בשימוש coverslips בדרך כלל בגודל סטנדרטי (24 x 60 מ"מ), הנפח של התא נקבעת בעיקר לפי העובי של המסגרת. לידע שלנו, מפרידי עם גודל ועומק אשר יכול להכיל את אמצעי האחסון מדגם מטופלים בדרך כלל בפרוטוקול זה אינם זמינים מסחרית. לכן הקדשנו מקטע בפרוטוקול פרטים על הזיוף והרכבה של מסגרת הדגימה קאמרית.
השלב הקריטי אחרים בפרוטוקול הזה הוא מאגר החליפין. אתגר בשלב זה הוא לוח הזמנים הנדרשים לביצוע עסקת החליפין הזו. הפצת קמפנילה MLV לאחר יצירת קשר עם המצע3 2O Al היא מיידית, הרחבת רציפה DLBM שמוביל שלה קריעה, הפסקת הניסוי (איור 2א, ב'). לכן, המריחה צריך להיות פיקוח מתמיד, ההחלפה מאגר חייב להתבצע באופן מסודר. צריכה ההחלפה לא להתבצע מהר מדי לאחר אתחול של המריחה, על מנת לאפשר את המדבקות ממברנה להגיע לגודל של האופטימלית (100-200 מיקרומטר בקוטר). מצד שני, אדהזיה מתמשך על פני גורם מתח הממברנה גבוהה, מה שמוביל קריעה. לפיכך, כל קרום טלאים בסופו של דבר קרע אם הפצת אינה נקטעת. העיתוי של קריעה שונה עבור כל תיקון, כיוון שהוא תלוי על הגודל ועל המבנה הפנימי של קמפנילה MLV ונגישות של ליפידים המצוי בו. לפיכך, מהרגע ההחלפה צריך להיות מסודרים כך timepoint בו המדבקות לא קרע עם גדלים אופטימליים מייצגים את רוב האוכלוסייה כולה. אתגר נוסף שלב מאגר exchange הוא הקצב של הסרת תוספת של המאגרים. ביצוע החלפה זו מהר מדי יש השפעה מזיקה על המבנים ממברנה הסופי (איור 2C-E). החילוץ מוגזמת של Ca2 +- HEPES מאגר מבלי להשאיר דקה בסרט נוזלי על המצע, תוצאות בכתמים יבשים, בלתי הפיך מעוות קרום (איור 2C). גם אם כמות נאותה של נוזל נשמר על פני השטח, תוספת פתאומי של המאגר Chelator-HEPES גם גורם ההפרעות של המבנים ממברנה. איור 2 D,E מציג את מראה טיפוסי של הממברנה hydrodynamically שיבשו מדבקות. השיבוש מורפולוגי באופן כללי אינה משפיעה בהכרח המאפיינים דינמי של המבנים הסופי (קרי, rearrangements צינורי באזורים שנותרו עדיין תתרחש). עם זאת, זה יהפכו להיות קשים להתבונן ההמרה החומרית על מבנים מעוות לדוגמה, באיור 2D, זה יהיה קשה לקבוע את הכיוון לעבר אשר המופרע קמפנילה MLV DLBM.
שינוי אפשרי אחד של הפרוטוקול הוא הרכב השומנים נעשה שימוש. המוקד העיקרי כבר על פוספוליפידים שולטים ההרכב ER ביונקים, שמרים16 (e. g., phosphatidylcholine (PC), phosphatidylethanolamine (PE), ו- phosphatidylinositol (PI). הניסויים המקורי בוצעו באמצעות תערובות של PC ו- PI-4. התוצאות שהוצגו, תערובת של PC וסמים, נגזרת של PE שימשה. עם זאת, לא כל השומנים שרירותי יצירות נמצאו כדי ליצור את מבנה צינורי שהושג דרך פרוטוקול זה. כמה תערובות השומנים השפעול ובדוקים אחרים כרוכים הלב הכולל תמצית תמצית שעועית סויה קוטבי, e. coli תמצית קוטבי, תערובות של PC עם stearoyl-2-hydroxy-sn-glycero-3-phosphoinositol (Lyso-PI) ביחסי בדרגות שונות, תערובות של PC-PE-פאי-Posphatidyl סרין (PS) ביחסי בדרגות שונות. מאז ממברנה צינורי מבנים בעלי עקמומיות גבוהים ודורשים סידור מיוחד של מולקולות ליפיד בודדים, הוא צפוי כי התופעה נצפתה הוא ליפיד הרכב הספציפי.
שינוי אחר יושמו פרוטוקול זה היא שיטת ייצור משטח. . הנה, אלד שימשה לפברק את Al2O3 מצופה coverslips. זה שונה מן השיטה במקור דווח על התצהיר, תגובתי sputtering4. בעוד זה מציין כי שיטת ייצור שטח חלופי יכול להוביל עדיין tubulation כמו אי. אר, מגבלה חשובה אחת נראה יחודיות של החומר משטח. המצב של התפשטות והעוצמה של אדהזיה תלויה מאוד תכונות החומר פני השטח, אשר משפיעים על גורמים כגון אלקטרוסטאטיות, wettability, hydrophobicity, חספוס פני השטח. Al2O3 משטחי מספקים חוזק אופטימלי, השומנים סרטים יכולים שניהם לצרף בעוצמה מספיקה להתפשט כמו קרום bilayer השומנים זוגי ולנתק לרשתות צינורי טופס בעת הסרה של Ca2 + יונים. . בדקנו בעבר על אותו ניסוי עם SiO2, בה השלפוחיות המוגלתיות multilamellar התפשטה כל קרום bilayer השומנים כפול, אך אין היווצרות רשת צינורי נצפתה על תוספת של chelators17- מצורף והתבקשתי ויצירת שפופרת הם נצפו רק על2O3 או פלזמה חרוט Al18. החקירות שלנו גילה כי הפרמטר התורמים שמוביל תופעה שכזו הייתה זיטה פוטנציאל של המשטחים, אילו באל, Al2O3 היו קרוב לאפס (mV) SiO2 שלילי באופן משמעותי. פוטנציאל זטה של בורוסיליקט דומה2SiO19; לכן, הידבקות של השומנים סרטים על בורוסיליקט הוא לא פחות חזק ובלתי הפיכה. למעשה, השומנים multilamellar מאגר מגע עם משטחים בורוסיליקט בדרך כלל מוביל היווצרות ליפיד יחיד bilayers20ולמסמנים מיידית. Al2O3 משטחים הנדרש עבור פרוטוקול זה אינם זמינים בקלות או מסחרית. עם זאת, ניתן מותאמת אישית-הורה מיצרנים זכוכית, המצע מיוחדים. גישה למתקני חדר נקי עם סרט דק ייצור ציוד מומלץ מאוד.
קיימים מלמטה למעלה השיטות האחרות כדי לבדות רשתות צינורי, כמו אר2,10 לערב חלבונים, כמו גם קלט אנרגיה כימית (למשל., GTP ו- ATP). רפופורט ועמיתיו2 דיווחו היווצרות של ER-רשתות על זכוכית coverslips במבחנה על ידי ערבוב החלבונים מעוקלת ממברנה נוכח בחדר המיון, עם phospholipids ו GTP. העבודה על-ידי. Bachand et al. 10 מראה איך רשתות צינורי דינמי כאלה יכולים להיווצר באמצעות המנועים המולקולריים ו- ATP כמקור אנרגיה. פרוטוקול זה הציג אינו דורש קרום חלבונים או הידרוליזה של תרכובות אורגניות לאנרגיה. הרכיבים החיוניים בלבד הם מצע מוצק פוספוליפידים. טיהור והפקת חלבונים אינם נדרשים. פרוטוקול זה מספק, מבחינת הפשטות של מולקולות מכוננת, המודל ER הבסיסיים ביותר.
בסיסי, המבוססים על השומנים ER מודל זה הוקמה, בניית מורכבות על ידי הוספת רכיבים הקשורים ER יש עניין, המאפשרת חקירה של הפרט משפיע על המערכת. בדומה הרשתות ER בפועל, צינורות במודל הם דינמיים. ההטיה כדי והעברה של חלבוני ממברנה שכותרתו או חלקיקים פלורסנט ברחבי הרשת צינורי, רשאי למסור מידע על כיוון התנועה ממברנה. כימוס וניטור של נוזלים פלורסנט בתוך DLBM צינורות במהלך השינוי, מיפוי אפשרי של התחבורה תוכן intratubular עשוי לשמש מוקד אחר. בסופו של דבר, מעבר מהמודל ER 2D הנובע פרוטוקול זה לעבר דגם תלת-ממד ER חלק עשוי להיות מאומץ דרך ומגעים הרשתות הידרוג ארכיטקטורות.
גילויים
המחברים אין לחשוף.
תודות
אנו מודים Jesorka אלדו פרופסור מאוניברסיטת צ'אלמרס של טכנולוגיה בשבדיה על דבריו שלא יסולא בפז על כתב היד. עבודה זו התאפשרה באמצעות תמיכה כספית המתקבל המענק פרוייקט מחקר המועצה של נורבגיה (Forskningsrådet) 274433, UiO: סביבת התכנסות מדעי החיים, גרנט 2015 פרוייקט מחקר שוודי המועצה (Vetenskapsrådet)-04561, כמו סטארט-אפ המימון הניתנים על ידי המרכז לרפואה מולקולרית נורבגיה & הפקולטה למתמטיקה ומדעי הטבע-אוניברסיטת אוסלו.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| בקבוק בצורת אגס 10 מ"ל | Lenz Laborglasinstrumente | 3.0314.13 | בו מכינים את תערובת השומנים |
| מזרק זכוכית המילטון 5 מ"ל (P/N) | המילטון | P/N81520 | להעברת הכלורופורם לכוס |
| מחט רכזת גדולה בהתאמה אישית מד 22 S | המילטון | 7748-18 | מחט נשלפת למזרק המצוינת בשורה 3 |
| המילטון 250 ומיקרו; מזרק זכוכית L | Hamilton | 7639-01 | משמש להעברת שומנים בכלורופורם לבקבוק |
| מד רכזת גדול 22 S | Hamilton | 7780-03 | מחט נשלפת למזרק שצוין בשורה 5 |
| המילטון 50 ומיקרו; מזרק זכוכית L | המילטון | 7637-01 | משמש להעברת שומנים מצומדים פלואורופור לבקבוק |
| מד רכזת קטן 22 S | Hamilton | 7770-01 | מחט נשלפת למזרק המצוינת בשורה 7 |
| כלורופורם נטול מים (≥ 99%) | סיגמא-אולדריץ' | 288306 | משמש להשלמת תערובת השומנים לסך של 300 ומיקרו; L |
| סויה L-& אלפא; ליפיד פוספטידיל כולין (Soy PC) | Avanti Polar Lipids Inc | 441601 | מיני פוספוליפידים התורמים ל-69% מכלל ההרכב/תערובת |
| 1,2-dioleoyl-sn-glycero-3-phosphoethanolamine (DOPE) | Avanti Polar Lipids Inc | 850725 | מיני פוספוליפידים התורמים ל-30% מהרכב/תערובת השומנים |
| L-& ליפיד פוספטידיל אינוזיטול (Soy PI) | Avanti Polar Lipids Inc | 840044 | מיני פוספוליפידים אלטרנטיביים התורמים ל-30% מהרכב/תערובת השומנים (מתוך המאמר המקורי Bilal and Gö zen, Biomaterials Science, 2017) |
| Texas Red 1,2-dihexadecanoyl-sn-glycero-3-phosphoethanolamine,triethylammonium salt (Texas Red DHPE)T1395MP | Invitrogen (Thermo Fisher Scientific) | מצומד פלואורסצנטי-ליפיד, 1% מהרכב השומנים/תערובת | |
| אמבטיות יבשות דיגיטליות/מחממי בלוק | תרמו פישר | 88870006 | לחימום גליצרול על מנת להפחית את צמיגיותו |
| גליצרול לביולוגיה מולקולרית ( ≥ 99%) | Sigma Life Science | G5516 | להכנת שומנים |
| <חוצץ חזק>PBS (pH=7.8); מרכיבים למטה בשורות 17-21 | משמש להכנת תרחיף השומנים | ||
| בסיס TRIZMA, תקן ראשוני וחוצץ (≥ 99%) | Sigma Life Science | T1503 | משמש להכנת מאגר PBS |
| אשלגן פוספט טריבסיסי, דרגת ריאגנט (≥ 98%) (K3PO4) | Sigma-Aldrich | P5629 | PBS רכיב בופר |
| מגנזיום גופרתי הפטהידרט, BioUltra (≥ 99,5%) KT (MgSO47H2O) | Sigma Life Science | 63138 | רכיב חיץ PBS |
| אשלגן פוספט מונובסיסי, נטול מים, זורם חופשי, רדי-דרי, ACS (KH2PO4) | Sigma-Aldrich | 795488 | רכיב חיץ PBS |
| חומצה אתילנדיאמין-טראצטית מלח דיסודיום דיהידרט מגיב ACS, 99.0-101.0% (Na2EDTA) | Sigma-Aldrich | E4884 | PBS ומרכיב חיץ Chelator-HEPES |
| מנקה אולטראסוני USC-TH | VWR | 142-0084 | אולטרסאונד של ליפידים מיובשים |
| מאייד סיבובי - Bü מאייד סיבובי צ'י דגם R-200 | סיגמא | Z626797 | לאידוי כלורופורם |
| מד לחץ - ווסת ואקום IRV-100 | SMC | IRV10/20 | לשליטה בערך הלחץ בזמן התייבשות שומנים |
| <חזק>חוצץ HEPES (pH=7.8); מרכיבים למטה בשורות 26-27 | משמש להחזרת לחות של שומנים. תכולה: 10 מ"מ HEPES עם 100 מ' NaCl מדולל במים דה-יונים טהורים במיוחד | ||
| HEPES &GE; 99.5% (טיטרציה) | Sigma Life Science | H3375 | רכיב חוצץ HEPES |
| נתרן כלורי לביולוגיה מולקולרית, DNase, RNase ופרוטאז, לא זוהה, ≥ 98% (טיטרציה) (NaCl) | Sigma Life Science | S3014 | מרכיב חוצץ HEPES |
| <חזק>בופר סידן-HEPES (pH = 7.8); רכיב יעיל למטה בשורה 29 | משמש לפיזור שומנים. תכולה: 10 מ"מ HEPES, 100 מ"מ NaCl, 4 מ"מ CaCl2 מדולל במים טהורים במיוחד | ||
| סידן כלורי נטול מים, BioReagent, מתאים לתרבית תאי חרקים, מתאים לתרבית תאי צמחים, ≥ 96.0% (CaCl2) | Sigma Life Science | C5670 | להכנת מאגר סידן-HEPES |
| <חזק>מאגר כלטור-HEPES (pH=7.8); מרכיב יעיל למטה בשורה 31 | משמש לקידום היווצרות רשתות צינוריות. תכולה: 10 מ"מ HEPES, 100 מ"מ NaCl, 10 מ"מ EDTA ו-7 מ"מ BAPTA מדולל במים דה-יונים טהורים במיוחד | ||
| 1,2-ביס(2-אמינופנוקסי)אתאן-N,N,N&פריים;,N&פריים;-חומצה טטראצטית מלח טטרסודיום ≥ 95% (HPLC) (BAPTA-Na4) | Sigma Life Science | 14513 | רכיב בופר Chelator-HEPES |
| נתרן הידרוקסיד | סיגמא | 30620 | תמיסה בסיסית המשמשת להתאמת ה-pH של המאגרים |
| מד pH מצטבר ומסחר; AE150 pH | Fisher Scientific | 1544693 | משמש למדידת ה-pH של כל המאגרים |
| צלחת פטרי זכוכית | VWR | HECH41042012 | 6 ס"מ, המשמש להכנת גיליון PDMS |
| מגיב ACS אשלגן הידרוקסיד, ≥ 85%, כדורים (KOH) | סיגמא-אולדריץ' | 221473 | להכנת תמיסת KOH לניקוי צלחת פטרי זכוכית לייצור יריעת PDMS |
| איזופרופנול פרימה רן 99.5% | אנטיבק AS | 600079 | מרכיב תמיסת KOH |
| תנור חימום וייבוש - venticell | MMM Medcenter Einrichtungen GmbH | MC000714 | לייבוש צלחת פטרי הזכוכית לאחר סילניזציה ולריפוי PDMS |
| Dichlorodimethylsilane ≥ 99.5% | סיגמא-אולדריץ' | 440272 | משמש לסילאניזציה של צלחת פטרי מזכוכית בה מכינים יריעת PDMS |
| משאבת ואקום | Cole-Parmer | EW-79202-05 | מחובר לייבוש |
| Sylgard 184 סיליקון אלסטומר חומר ריפוי | Dow corning | 24236-10 | ערכה להכנת תמיסת PDMS |
| Sylgard 184 בסיס | |||
| אזמל חד פעמי | Swann-Morton | 11798343 | משמש לחיתוך |
| ה-PDMS כיסוי החלקות | Menzel -Glä סר | MEZ102460 | 24x60 מ"מ. משמש להפקדת סרט דק של Al2O3 |
| Atomic מערכת שקיעת שכבה אטומית | Beneq | TFS200 (מספר דגם) | מערכת שקיעת שכבה אטומית המשמשת להפקדת סרט דק של Al2O3 בזכוכית כיסוי מיקרוסקופ |
| Ellipsometer | ג'יי.א. וולן ושות' | Alpha-SE (שם דגם) | מערכת המשמשת לסימון עובי הסרט המופקד על משטח זכוכית |
| סריקת לייזר קונפוקל מיקרוסקופ | Leica Microsystems | Leica TCS SP8 X | מיקרוסקופ המשמש להדמיה של הניסוי |
| Objective 40x, 1.3 | NA Leica Microsystems | 1550635 משמש להדמיה של הניסוי | |
| מקור לייזר אור לבן | Leica Microsystems | Leica TCS SP8 X | לעירור של פלואורופור הממברנה |
מקורות
- Chen, S., Novick, P., Ferro-Novick, S. ER structure and function. Current Opinion in Cell Biology. 25 (4), 428-433 (2013).
- Powers, R. E., Wang, S., Liu, T. Y., Rapoport, T. A. Reconstitution of the tubular endoplasmic reticulum network with purified components. Nature. 543 (7644), 257-260 (2017).
- Pendin, D., McNew, J. A., Daga, A. Balancing ER dynamics: Shaping, bending, severing, and mending membranes. Current Opinion in Cell Biology. 23 (4), 435-442 (2011).
- Bilal, T., Gözen, I. Formation and dynamics of endoplasmic reticulum-like lipid nanotube networks. Biomaterials Science. 5 (7), 1256-1264 (2017).
- Shibata, Y., et al. Mechanisms determining the morphology of the peripheral ER. Cell. 143 (5), 774-788 (2010).
- Ozcan, L., Tabas, I. Role of endoplasmic reticulum stress in metabolic disease and other disorders. Annual Review of Medicine. 63, 317-328 (2012).
- Yamanaka, T., Nukina, N. ER dynamics and derangement in neurological diseases. Frontiers in Neuroscience. 12, (2018).
- Taalab, Y. M., et al. Mechanisms of disordered neurodegenerative function: Concepts and facts about the different roles of the protein kinase RNA-like endoplasmic reticulum kinase (PERK). Reviews in the Neurosciences. , (2018).
- Shemesh, T., et al. A model for the generation and interconversion of ER morphologies. Proceedings of the National Academy of Sciences of the United States of America. 111 (49), 5243-5251 (2014).
- Bouxsein, N. F., Carroll-Portillo, A., Bachand, M., Sasaki, D. Y., Bachand, G. D. A continuous network of lipid nanotubes fabricated from the gliding motility of kinesin powered microtubule filaments. Langmuir. 29 (9), 2992-2999 (2013).
- Sackmann, E. Endoplasmatic reticulum shaping by generic mechanisms and protein-induced spontaneous curvature. Advances in Colloid and Interface Science. 208, 153-160 (2014).
- Jesorka, A., et al. Generation of phospholipid vesicle-nanotube networks and transport of molecules therein. Nature Protocols. 6, 791(2011).
- Hook, D. A., Olhausen, J. A., Krim, J., Dugger, M. T. Evaluation of Oxygen Plasma and UV Ozone Methods for Cleaning of Occluded Areas in MEMS Devices. Journal of Microelectromechanical Systems. 19 (6), 1292-1298 (2010).
- Gözen, I., et al. Fractal avalanche ruptures in biological membranes. Nature Materials. 9 (11), 908-912 (2010).
- Lobovkina, T., Dommersnes, P., Joanny, J. -F., Hurtig, J., Orwar, O. Zipper Dynamics of Surfactant Nanotube Y Junctions. Phys Rev Lett. 97, (2006).
- van Meer, G., Voelker, D. R., Feigenson, G. W. Membrane lipids: where they are and how they behave. Nature Reviews Molecular Cell Biology. 9 (2), 112-124 (2008).
- Gözen, I., et al. Repair of large area pores in supported double bilayers. Soft Matter. 9 (10), 2787-2792 (2013).
- Gözen, I., et al. Thermal migration of molecular lipid films as a contactless fabrication strategy for lipid nanotube networks. Lab on a Chip. 13 (19), 3822-3826 (2013).
- Sides, P. J., Hoggard, J. D. Measurement of the Zeta Potential of Planar Solid Surfaces by Means of a Rotating Disk. Langmuir. 20 (26), 11493-11498 (2004).
- Nissen, J., Jacobs, K., Rädler, J. O. Interface Dynamics of Lipid Membrane Spreading on Solid Surfaces. Physical Review Letters. 86 (9), 1904-1907 (2001).
הדפסות חוזרות והרשאות
