פרוטוקול לחקר אירועים המונעים על ידי FcγRIIIa על ידי נוגדנים טיפוליים בתאי הרג טבעיים אנושיים מתואר כאן. פלטפורמת גירוי מלאכותית זו מאפשרת חקירה של פונקציות אפקט במורד הזרם כגון degranulation, ייצור chemokine / ציטוקינים, ומסלולי איתות בתיווך FcγRIIIa וחלקי Fc של נוגדנים המעורבים בכריכה.
מאמר שיטה
הערכה של אירועי תאי רוצח טבעי אנושי המונעים על ידי מעורבות FcγRIIIa בנוכחות נוגדנים טיפוליים
במאמר זה
סיכום
תקציר
מנגנון פעולה אחד ליעילות קלינית על ידי נוגדנים טיפוליים הוא קידום פונקציות הקשורות למערכת החיסון, כגון הפרשת ציטוקינים וציטוקסיות, המונעים על ידי FcγRIIIa (CD16) המתבטאים בתאי רוצח טבעי (NK). תצפיות אלה הובילו למחקר המתמקד בשיטות להגברת אירועים בתיווך קולטן Fc, הכוללים הסרת moiety fucose נמצא על החלק Fc של הנוגדן. מחקרים נוספים בהירו את השינויים המכניסטיים באיתות, בתהליכים תאיים ובמאפיינים ציטוטוקסיים המגבירים את פעילות ADCC עם נוגדנים אפוקוסילים. בנוסף, מחקרים אחרים הראו את היתרונות הפוטנציאליים של נוגדנים אלה בשילוב עם מעכבי מולקולות קטנות. ניסויים אלה הדגימו את המנגנונים המולקולריים והתאים שבביד היתרונות של שימוש בנוגדנים אפוקוסילציה בהגדרות משולבות. רבות מהתצפיות הללו התבססו על בדיקת הפעלה במבחנה מלאכותית שבה הופעלה ה- FcγRIIIa על תאי NK אנושיים על ידי נוגדנים טיפוליים. בדיקת אסקור זו סיפקה את הגמישות לחקור פונקציות תא NK של אפקט במורד הזרם, כגון ייצור ציטוקינים ופירוק. בנוסף, נעשה שימוש ב- assay זה כדי לחקור מסלולי איתות ולזהות מולקולות שניתן לאפנן או לשמש כסמנים ביולוגיים. לבסוף, מולקולות טיפוליות אחרות (כלומר, מעכבי מולקולות קטנות) נוספו למערכת כדי לספק תובנות על השילוב של טיפולים אלה עם נוגדנים טיפוליים, החיוניים במרחב הקליני הנוכחי. כתב יד זה נועד לספק בסיס טכני לביצוע הפעלה מלאכותית זו של תאי NK אנושיים. הפרוטוקול מדגים שלבי מפתח להפעלת תאים וכן יישומים פוטנציאליים במורד הזרם הנעים בין קריאות פונקציונליות לתצפיות מכניות יותר.
מבוא
במהלך העשורים האחרונים, יש התמקדות עצומה בפיתוח טיפולים ממוקדים בסרטן באמצעות נוגדנים. נוגדנים טיפוליים, כגון trastuzumab ו rituximab, פועלים באמצעות מנגנונים מרובים, כולל מניעת dimerization של מולקולות איתות וגיוס של המערכת החיסונית1,2. האחרון מושג באמצעות ציטוקסיה תאית תלוית נוגדנים (ADCC), שבה לימפוציטים הנקראים תאי רוצח טבעי (NK) מובאים לתא יעד על ידי הנוגדן1,2. על ידי הצבת התאים בסמיכות זה לזה, תא ה- NK מופעל ויכול ללזר תא גידול /מטרה באמצעות הפרשת מולקולות אפקט3.
ברמה המולקולרית, החלק Fab של הנוגדן קושר את האנטיגן הקוגנייט שלו המתבטא בתאי הגידול, בעוד חלק Fc שלה עוסק FcγRIIIa לידי ביטוי בתאי NK כדי להביא את שני התאים יחד1,2. לאחר מעורבות של FcγRIIIa, נתיבי איתות (כלומר, נתיבי MAPK ו PI3K) מניעים סידור מחדש של שלד ציטוקי, ייצור ציטוקינים וציטוקסיות4,5,6,7,8,9. לפיכך, ADCC הוא אירוע מונחה FcγRIIIa בתיווך תאי NK ונוגדנים.
מכיוון ש-ADCC נחשב למנגנון פעולה עבור נוגדנים טיפוליים אלה, החוקרים חיפשו שיטות להגדלת ADCC על ידי שינוי הנוגדן. שינוי אחד היה הסרת פוקוס בשרשרת אוליגוסכריד המחוברת לאספרגין 297, מה שמגביר את הזיקה המחייבת של חלק Fc של הנוגדן ל- FcγRIIIa10,11,12. במחקרים בבעלי חיים, עכברים שקיבלו נוגדנים אפוקוסילאטים הציגו צמיחה איטית יותר של הגידול בהשוואה לעכברים שטופלו בעמיתו הפוקוסילאט13. חשוב מכך, obinutuzumab (למשל, Gazyva, נוגדן אפוקוסילציה מאושר) הראה יעילות טובה יותר ביחס rituximab (למשל, Rituxan, עמיתו fucosylated) בחולים שאובחנו עם לוקמיה לימפוציטית כרונית או לימפומהזקיקית 14,15.
עד לאחרונה, המנגנונים שבביד ADCC מוגבר באמצעות נוגדנים אפוקוסילציה לא היו ידועים. בשילוב עם העובדה כי ישנן תוכניות מחקר רבות בפיתוח נוגדנים טיפוליים כדי להשתמש במנגנונים מונחי FcγRIIIa כדי למקד תאים סרטניים, חובה לפתח בדיקות במבחנה שבוחנים את ההיבטים המולקולריים והתאים שמקדמים נוגדנים אלה. זה מספק הבנה בסיסית של מנגנוני הפעולה, כמו גם את הפוטנציאל לגלות סמנים ביולוגיים. ככזה, בדיקת הפעלה מלאכותית פותחה כדי לחקור פונקציות תלויות נוגדנים FcγRIIIa בנוסף לאיתות ומאפיינים תאיים8. באמצעות מחקרים אלה, המנגנונים שבבסיס יעילות מוגברת של נוגדנים אפוקוסילציה הובהרו שבו זיקה מחייבת משופרת מגבירה איתות כדי לקדם תכונות הסלולר ומאפיינים ציטוטוקסיים8.
המגמה הנוכחית בניסויים קליניים היא שימוש בשילוב של מולקולות טיפוליות16. אחד המסלולים המוטציה הנפוצה ביותר הוא מסלול PI3K, אשר הניע מאמץ עצום בפיתוח מעכבי מולקולות קטנות כי היעד מרכיבים של מסלול זה17,18,19,20. עם זאת, האופן שבו מולקולות אלה פועלות בשילוב עם נוגדנים טיפוליים אינו ידוע יחסית, במיוחד בשילובים שבהם המעכב עשוי להשפיע על מולקולות הדורשות את מסלול PI3K כדי לתפקד, כגון אלה המונעים על ידי נוגדנים טיפוליים.
לכך, במבחנה אסייד המועסקת עבור מחקרי נוגדנים אפוקוסילאט שימש גם כדי ללמוד את השילוב של מעכבי PI3K ונוגדנים טיפוליים. מחקרים אלה הגדירו את המאפיינים המולקולריים של עיכוב PI3K על אירועים מונעי PI3K נוגדן טיפולי ותיארו כיצד נוגדנים אפוקוסילציה יכול לקזז את האובדן הזה של איתות9. ממצאים אלה רלוונטיים כאשר הם מעניקים הדרכה פוטנציאלית לעיצוב ניסויים קליניים. בנוסף, סדרה זו של ניסויים הובילה גם לתצפיות המתוארות הראשונות לוויסות קינטי של מסלול האיתות PI3K לווסת תמלול וייצור כימין / ציטוקינים, אשר עשוי לשמש סמנים ביולוגיים פוטנציאליים9.
הבדיקה המלאכותית של הפעלת הפריה ההפריה המשמשת להגדרת מאפייני האיתות והסלולר שתוארו לעיל תוכננה לחקור אירועים מונחי FcγRIIIa בתאי NK בתיווך נוגדנים בהיעדר תאי יעד. ללא תאי יעד במערכת, ניתן לייחס את כל אירועי האיתות והפונקציות שנצפו ישירות לתאי ה- NK. ב- assay המוצג, נוגדן מתווסף לתאי NK מטוהרים, ובשלב זה חלק Fc קושר את FcγRIIIa. זה ואחריו crosslinking של הנוגדן באמצעות נוגדן שרשרת אור אנטי אנושי כדי לעורר באופן מלאכותי את התאים. קישור צולב של הנוגדן מחקה כריכה של אנטיגן היעד כדי ליצור פלטפורמת איתות שמעוררת אירועי במורד הזרם. בהתאם לאורך הגירוי, החוקרים יכולים להעריך איתות, תהליכים תאיים, מאפיינים ציטוטוקסיים, ופונקציות אפקט8,9. באופן דומה, בדיקות אלה מספקות גם גמישות בחקר אירועים אלה כאשר נוגדנים משולבים עם מולקולות אחרות9.
יחד, זהו בסיס במבחנה אידיאלי לחקור נוגדנים טיפוליים המעוררים תגובות תאי NK באמצעות FcγRIIIa שלהם כחלק ממנגנון הפעולה. פרוטוקול זה מתאר את הביצועים של הפעלה במבחנה זו ומספק תובנה לגבי הקריאות השונות שניתן לבצע.
פרוטוקול
הפרוטוקול הבא הוא בהתאם להנחיות ועדת האתיקה של המחקר האנושי של iQ Bioscience.
1. בידוד מחשבי PBMCs והעשרה/טיהור של תאי NK
הערה: ניתן לבצע גם שיטות אחרות לבידוד של תאים חד-גרעיניים בדם היקפי (PBMCs) והעשרה/טיהור.
- לצייר 200 מ"ל של דם בתנאים מוסדרים לתוך צינור המכיל הפרין.
- הוסף 15 מ"ל של מדיום הדרגתי צפיפות לתוך צינור 50 מ"ל עם מחסום נקבובי משולב. סובב את הצינור ב 1000 x g עבור 30 s.
- הוסף 12.5 מ"ל של דם לתוך הצינור ואחריו עוד 12.5 מ"ל של PBS, בעדינות להפוך 3x. לסובב את הצינור ב 800 x g במשך 15 דקות בטמפרטורת החדר (RT) ללא הפסקות.
- הכן צינור חרוטי 50 מ"ל עם 40 מ"ל של PBS עבור כל צינור עם מחסום נקבובי בזמן התאים מסתובבים.
- בזהירות להסיר את הצינורות ולבדוק לאחר צנטריפוגה. בדוק שכבה לבנה דקה, גלויה להפליא של PBMCs מעל המחסום הנקבובי, בין תיחום 20 מ"ל ו 25 מ"ל על צינור 50 מ"ל.
- יש להסיר בזהירות נוזלים רבים ככל האפשר מלמעלה באמצעות פיפטה מבלי להפריע לשכבת PBMC הדקה והלבנה.
- עם פיפטה סרולוגית נקייה של 10 מ"ל, הסר בעדינות את שכבת ה- PBMC בנוסף לשכבת הנוזל הצלולה והצהבהבה עד המסנן של הצינור.
- לגרש את PBMCs ונוזל לתוך חרוט 50 מ"ל המכיל PBS מוכן בשלב 1.4. ספין צינורות ב RT ו 300 x g במשך 5 דקות.
- שאפו את שטיפת PBS והוסיפו 40 מ"ל נוספים של PBS. ספין צינורות ב RT ו 300 x g במשך 5 דקות.
- לאחר הכביסה, לספור את התאים resuspend אותם ב 40 μL של 2% BSA / PBS לכל 1 x 10⁷ תאים.
- המשך לבידוד של תאי NK בשיטת הבחירה. האפשרויות כוללות מיון ידני או אוטומטי מבוסס חרוזים מגנטיים9,21. מיון תאים המופעל על ידי פלואורסצנטיות יכול להתבצע גם22.
- הסר aliquot קטן של תאים כדי לקבוע את הטוהר של תאי NK על ידי ציטומטריית זרימה. אסטרטגיית Gating כוללת את הדברים הבאים: שער על תאים חיים המבוססים על פרופיל פיזור קדימה לעומת צד, ולאחר מכן להעריך את הטוהר בהתבסס על סמני NK (למשל, CD3, CD56) באוכלוסייה החיה הספציפית. טוהר טיפוסי הוא >95%.
- לאחר השלמת הבידוד, ספין תאים ב RT ו 300 x g במשך 5 דקות כדי גלולה ושאיפה.
- resuspend הכדור התא ל 1 x 10⁷ תאים / מ"ל ב RPMI 1640 עם חומרים מזינים, 10% FBS מומת בחום, 1 mM נתרן פירובט, 55 mM 2-ME, ו 10 mM HEPES (pH = 7.2).
2. הפעלה בתיווך נוגדנים של תאי NK באמצעות FcγRIIIa
- הגדר microcentrifuge בקירור ל 4 °C (5 °F).
- יש לפזר 1 x 10⁶ (100 μL) של תאי NK תלויים מחדש לתוך צינורות 1.5 מ"ל ומניחים על קרח.
הערה: תאים ניתן לחלק לתוך צלחת U-תחתון 96 גם אם יש דגימות רבות. - הכן 1 μL של 100 מיקרוגרם / מ"ל rituximab (או נוגדן של עניין) לכל מדגם ולהוסיף 1 μL לתאים לריכוז סופי של 1 מיקרוגרם / mL נוגדן.
הערה: ניתן להוסיף מולקולות אחרות לתאים בשלב זה או מוקדם יותר להערכת אפקטים משולבים. כאן, ritixumab שימש לגירוי. במחקרים קודמים, מעכבי מולקולות קטנות נוספו לגירויים9. - לדגור על הדגימה על קרח במשך 30 דקות. במהלך הדגירה, להכין 50 μL של 50 מיקרוגרם / mL נוגדן שרשרת אור לכל מדגם במדיה לחום עד 37 °C (50 °F) על בלוק חום או באמבט מים.
- לאחר דגירה של תאים על קרח, להוסיף 1 מ"ל של מדיה קרה כקרח ספין ב 135 x g במשך 5 דקות ב 4 °C (70 °F). לשטוף שוב עם 1 מ"ל של קר קר קרח מדיה.
- שאפו את supernatant לאחר הכביסה האחרונה ולהוסיף 50 μL של תערובת שרשרת אור אנטי אנושית מוכן בשלב 2.5.
- מיד לדגור דגימות עבור משתמש הקצה קבע נקודות זמן ב 37 °C (55 °F) על בלוק חום או באמבט מים.
- להפסיק גירוי על ידי הוספת 1 מ"ל של מדיה קרה כקרח ומיד לסובב דגימות בצנטריפוגה בקירור ב 135 x g במשך 5 דקות. לשטוף שוב עם 1 מ"ל של מדיה קרה כקרח.
3. יישומים וקריאה במורד הזרם
- חקירה של מולקולות איתות בתאי NK מגורה FcγRIIIa על ידי ניתוח כתם מערבי
הערה: ניתן להשתמש במנגנוני הפרדת חלבון שונים והעברת ממברנה.- לאחר הכביסה האחרונה עם מדיה קרה כקרח (שלב 2.8), תאי ליזה עם 20 μL של מאגר RIPA המכיל פוספטאז ומעכבי פרוטאז לערבב במשך 30 דקות על קרח.
- ספין צינורות ב 2100 x g במשך 15 דקות ב 4 °C (70 °F). מעבירים את הליזאט לצינור 1.5 מ"ל נקי ומוסיפים את ריאגנטים הנדרשים להפרדת חלבון.
- להפריד חלבונים על ג'ל SDS-PAGE ולהעביר על קרום ניטרוצלולוז או PVDF בעקבות פרוטוקולים סטנדרטיים.
- לחסום ולחקור את הממברנה על פי גליון הנתונים של היצרן עבור נוגדן הזיהוי העיקרי (כאן, pAKT, pPRAS 40, ו pERK1/2 שימשו).
- הוסף נוגדן משני מצומד HRP ומחדש כימותרפיה לפי המלצות היצרן על קרום PVDF. השתמש בסרט רנטגן או בכלי זיהוי כדי לדמיין (כאן, pAKT זוהה ב 60 kDa, pPRAS40 ב 40 kDa, ו pERK1/2 ב 42 kDa ו 44 kDa).
- בידוד של mRNA והכנה לניתוח ביטוי גנים של תאי NK מגורה FcγRIIIa (טבלת חומרים)
- לאחר נקודת הזמן לגירוי הוא הגיע (שלב 2.7), מניחים את הצינור על קרח מיד להסתובב בצנטריפוגה בקירור ב 135 x g במשך 5 דקות (בדומה לשלב 2.8).
- הסר את supernatant ולשטוף 2x עם 1 מ"ל של PBS קר כקרח.
- תאי ליזה באמצעות חילוץ RNA גואנידון איזוטיווציאנאט(טבלת חומרים). השתמש ב- 1 מיקרוגרם של mRNA כדי לבצע תמלול הפוך באמצעות משושים אקראיים עם ערכהמסחרית (טבלת חומרים).
הערה: כל שיטה של מיצוי RNA או סינתזת cDNA ניתן להשתמש9,23,24. - להקפיא cDNA ב -20 °C עד ניתוח ביטוי גנים.
- הערכת ארגון מחדש של שלד ציטוסיאלי בתאי NK מגורה FcγRIIIa
- לאחר הכביסה האחרונה עם מדיה קרה כקרח (שלב 2.8), resuspend גלולה התא עם 50 μL של 3.7% paraformaldehyde במשך 10 דקות ב RT.
- הוסף 1 מ"ל של PBS ולסובב ב 135 x g במשך 5 דקות ב RT. חזור על כביסה זו פעם נוספת.
- הוסף 100 μL של 0.1% טריטון X-100/PBS למשך 5 דקות כדי לחדיר תאים, ותסובב תאים ב- 135 x g למשך 5 דקות ב- RT לכדור.
- הוסף 100 μL של 5 יחידות / מ"ל AF488-תווית פאלואידין מדולל ב 1% BSA / PBS ודגרה במשך 20 דקות ב RT.
- הוסף 1 מ"ל של PBS ולסובב ב 135 x g במשך 5 דקות ב RT לשטוף. resuspend גלולה התא בנפח הרצוי לניתוח ציטומטרי זרימה.
- הערכת degranulation של תאי NK מגורה FcγRIIIa באמצעות מכתים משטח CD107a
- לדגור על התאים עם הנוגדן של עניין על קרח כמתואר בשלבים 2.1-2.4. במהלך הדגירה, להכין 50 μL של תערובת נוגדנים לכל מדגם. הכן את התערובת במדיה התא עם ריכוז סופי של 50 מיקרוגרם / mL נוגדן שרשרת אור κ ו 1 מיקרוגרם / mL פלואורוכרום שכותרתו CD107a.
- לאחר הדגירה של התאים על הקרח, להוסיף 1 מ"ל של מדיה קרה כקרח. ספין ב 135 x g במשך 5 דקות ב 4 °C (70 °F), ולאחר מכן לשטוף שוב עם 1 מ"ל של קרח קר מדיה.
- שאפו את supernatant לאחר הכביסה האחרונה, ולאחר מכן להוסיף 50 μL של תערובת שרשרת אור אנטי אנושית ודגרה ב 37 °C (57 °F) עבור נקודות הזמן הרצויות.
- בנקודות הזמן הרצויות, להוסיף 1 מ"ל של PBS ולסובב ב 135 x g במשך 5 דקות ב RT. לשאוף supernatant ולהוסיף 100 μL של 4% paraformaldehyde. דגירה ב RT במשך 10 דקות.
- הוסף 1 מ"ל של PBS ולסובב ב 135 x g במשך 5 דקות ב RT לשטוף. resuspend גלולה התא בנפח הרצוי לניתוח ציטומטרי זרימה.
- הערכה של ייצור כימוקין/ציטוקינים מתאי NK מגורה FcγRIIIa
הערה: שיטות ו/או ערכות שונות עשויות לשמש להערכת ייצור כימוקין וציטוקינים.- לאחר נקודת הזמן לגירוי הוא הגיע (שלב 2.7), מיד למקם את הצינור על קרח להסתובב צנטריפוגה בקירור ב 135 x גרם במשך 5 דקות ב 4 °C (5 °F).
- מעבירים את הסופר-נט לכלי נקי. להקפיא את supernatant עד הערכת chemokine או ציטוקינים באמצעות ההסתה הרצויה.
הערה: כדורי תאים יכולים כעת להיות שטף עם PBS קר כקרח ומעובד עבור איתות, ביטוי גנים, ומחקרי ארגון מחדש של שלד.
תוצאות
זה חיוני כי טוהר תא NK הוא גבוה כי החלק Fc של נוגדנים יכול לאגד את FcγRIIIa לידי ביטוי בסוגי תאים אחרים, כגון מונוציטים. עם טוהר גבוה, התצפיות שנעשו ניתן לייחס ישירות לאירועים מונחי FcγRIIIa בתאי NK. כאן, לתאי NK היה יותר מ-90% טוהר בהתבסס על כתמי CD56 ו-CD3(איור 1). בנוסף, הכדאיות עמדה על >95%. יש להשתמש בטיפול בעת שימוש בבידודים עם כדאיות נמוכה יותר. כדי להבטיח שהאירועים יונעו על ידי FcγRIIIa, בוצעו כתמים מערביים לפוספו-AKT (pAKT), פוספו-PRAS40 (pPRAS40) ופוספו-ERK1/2 (pERK1/2), שבהם הופעלו תאי NK למשך 1-5 דקות. כפי שניתן לראות, הצטברות של מולקולות אלה נצפתה (איור 2). באופן דומה, תאי NK מופעלים הביעו MIP-1α, MIP-1β, IFN-γ ו- TNF-α, כפי שמוצג בניתוח ביטוי גנים (איור 3).
בנוסף, בסידור מחדש של שלד נצפה בתאים פעילים(איור 4). אחוז מתאי ה-NK שעוררו 4 שעות הביע CD107a על פני התא(איור 5). בנוסף, IFN-γ, TNF-α, MIP-1α, MIP-1β ו RANTES זוהו בסופר-טבעי לאחר 3 שעות של גירוי ( איור6). קריאות אלה צפויות להתבסס על מחקרים שפורסמו כמו תאי NK מופעלים יהיו חלבונים זרחן אלה, כמו גם ביטוי גנים וייצור של chemokines שהוזכרו וציטוקינים8,9. בכל הניסויים, תנאי גירוי צריכים לכלול שרשרת אור אנטי-אנושית רק שליטה ונוגדנים ללא בקרת הצלבת אור אנטי אנושית. תאי NK אלה לא צריכים להראות שום ביטוי גן זרחן, degranulation, ייצור chemokine / ציטוקינים, או ביטוי גן chemokine / ציטוקינים.
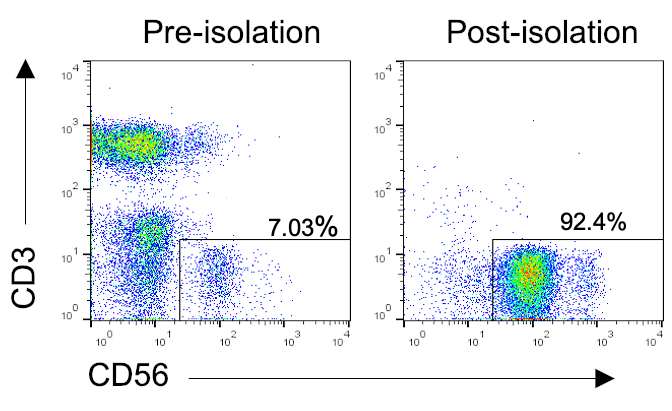
איור 1: פרופילי זרימה מייצגים של טוהר תאי NK לאחר בידוד ממחשבים אישיים. מחשבי PBMCs היו מבודדים מדמו של תורם בריא, ואחריו העשרה של תאי NK באמצעות שיטת בחירה שלילית לבידוד תאי NK אנושיים (טבלה של חומרים). תאים הוכתמו ב- CD56 וב- CD3 לפני ואחרי העשרה כדי לקבוע טוהר. התוויות נקודה מייצגות של CD56 לעומת CD3 לפני ואחרי הבידוד. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
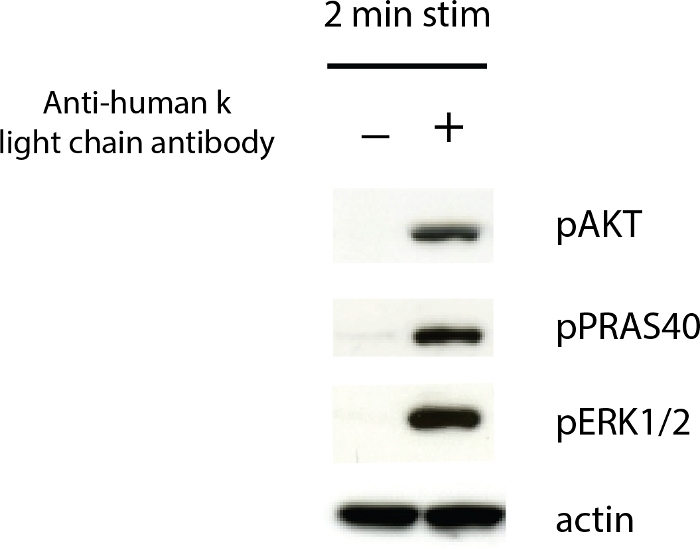
איור 2: תאי NK המופעלים באמצעות FcγRIIIa מציגים מולקולות איתות זרחן. תאים היו מגורה עם rituximab במשך 2 דקות, ליסאטים התא נעשו על פי הפרוטוקול. ליסאטים הופרדו על ג'ל 4%-12%, ואחריו העברה על קרום PVDF. הממברנה נחקרה עם נוגדנים נגד pAKT, pPRAS40, pERK1/2, ו actin. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
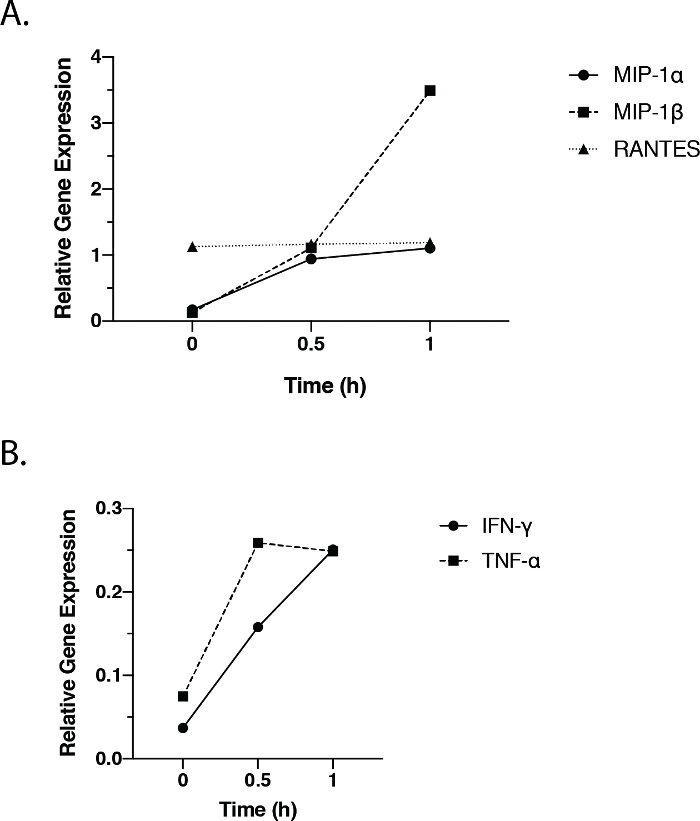
איור 3: תאי NK המופעלים באמצעות FcγRIIIa מבטאים גנים של כימוקין וציטוקינים. תאי NK היו מגורה עם rituximab עבור 0 שעות, 0.5 שעות, ו 1 שעות mRNA נאסף, תעתיק לאחור, וחשף ניתוח qPCR עבור MIP-1α, MIP-1β, RANTES, IFN-γ, ו TNF-α (טבלת חומרים). (A)ביטוי יחסי של MIP-1α, MIP-1β ו- RANTES בכל נקודת זמן. (B)ביטוי יחסי של IFN-γ ו- TNF-α בכל נקודת זמן. הערכים נרמלו לגן המעשין. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
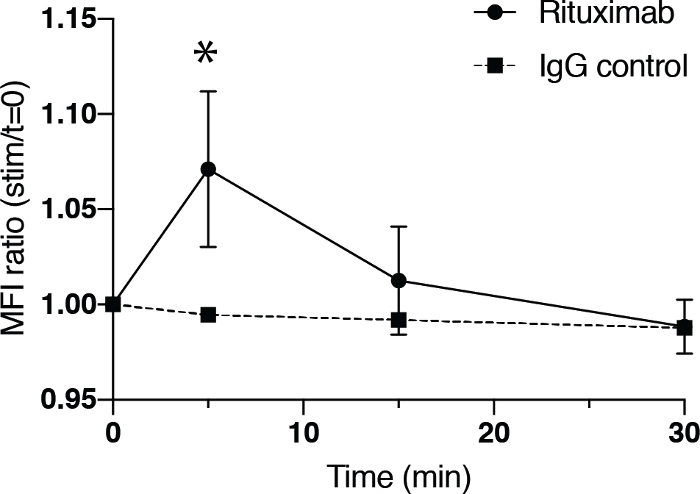
איור 4: תאי NK המופעלים על ידי FcγRIIIa מציגים סידור מחדש של שלד. תאי NK היו מגורה עם rituximab במשך 0 דקות, 5 דקות, 15 דקות, ו 30 דקות, ואחריו הערכה לסידור מחדש של שלד ציטו- שלד על ידי כתמי פאלואידין וציטומטריית זרימה. היחס בין MFI בנקודת זמן ניסיונית ל- MFI בזמן 0 של תאי NK מגורה עם rituximab (עיגול, קו מוצק) או נוגדן משני לבד (קו מרובע, מנוקד). מייצגים את ה- SD של ארבעה שכפולים. כוכביות מייצגות משמעות סטטיסטית בהתבסס על מבחן t-t של סטודנט דו-זנבי (*p < 0.05). אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
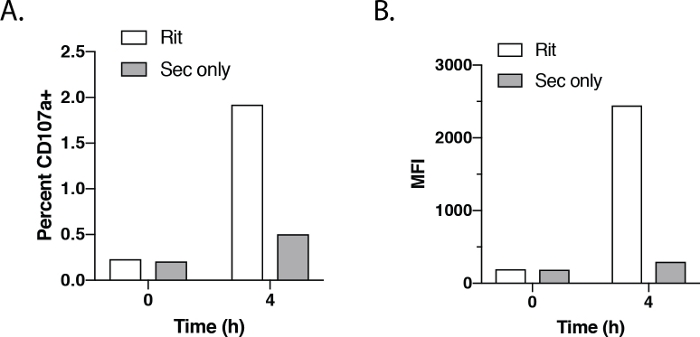
איור 5: תאי NK המופעלים באמצעות FcγRIIIa מבטאים CD107a. תאי NK היו מגורה עם rituximab עבור 4 שעות ואחריו הערכה degranulation על ידי CD107a וציטומטריית זרימה. (A)אחוז תאי NK המביעים CD107a לאחר גירוי עם rituximab (סורגים לבנים) או נוגדן שרשרת אור אנטי אנושי (פסים אפורים) עבור 0 h ו 4 h. (B) CD107a MFI של תאי NK מגורה עם rituximab (סורגים לבנים) או נוגדן שרשרת אור נוגדן (פסים אפורים) לאחר 0 h ו 4 שעות של טיפול. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
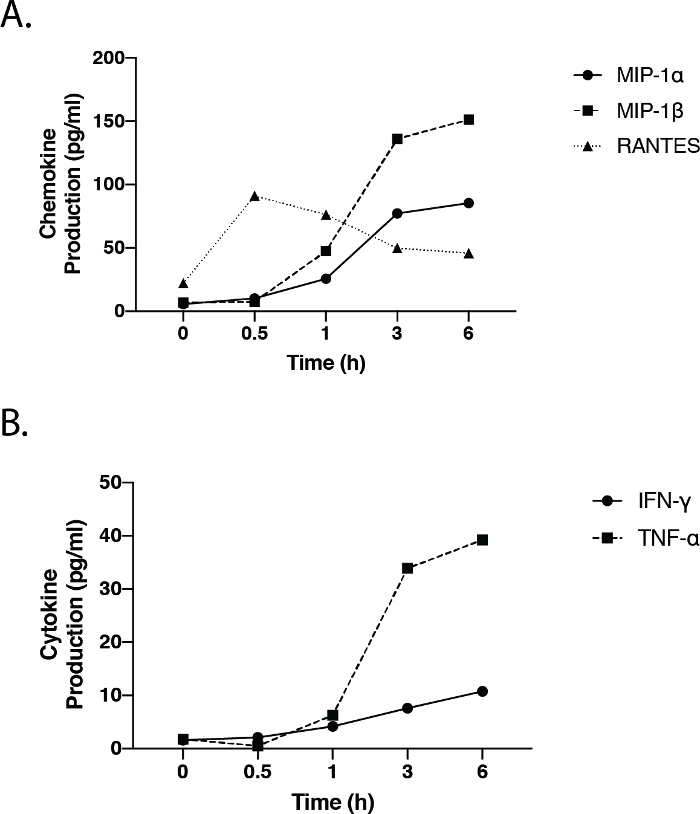
איור 6: תאי NK המופעלים על ידי FcγRIIIa מפרישים כימותרפיה וציטוקינים. תאי NK היו מגורה עבור 0, 0.5, 1, 3, ו 6 שעות עם rituximab. Supernatant נאסף כדי למדוד שחרור של MIP-1α, MIP-1β, RANTES, IFN-γ, ו TNF-α על ידי שיטת הערכת ציטוקינים מבוססי זרימה וחרוזים (טבלת החומרים). (A) MIP-1α, MIP-1β וייצור RANTES בכל נקודת זמן. (B)IFN-γ וייצור TNF-α בכל נקודת זמן. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
דיון
פרוטוקול זה מתאר שיטות לחקר אירועים המונעים על ידי FcγRIIIa בתאי NK בתיווך נוגדנים. טכניקות אלה מאפשרות הערכה של מנגנוני פעולה פוטנציאליים של נוגדנים טיפוליים, אשר מוצע להיות ADCC1,2. באופן ספציפי, שיטות אלה מספקות גמישות בחקר מסלולי איתות מולקולריים ותהליכים תאיים האחראים על ADCC. הם גם מאפשרים התבוננות של פונקציות משפיעות אחרות, כגון ייצור chemokine וציטוקינים. בנוסף, שיטות אלה מאפשרות זיהוי של סמנים ביולוגיים פוטנציאליים ומולקולות שעשויות להיות ממוקדות כדי לווסת את ADCC.
הבסיס לפרוטוקול זה הוא גירוי מלאכותי של תאי NK באמצעות FcγRIIIa עם נוגדנים בהיעדר תאי יעד. תאי יעד הקשורים לנוגדנים משמשים בדרך כלל לקידום הקישור הצולב של קולטני Fc כדי ליצור פלטפורמה המניעה אפקטים איתות ובמורד הזרם. במקום זאת, crosslinking מתבצע באמצעות נוגדן שרשרת אור אנטי אנושית ב- assay זה, תוך עקיפת הצורך בתאי יעד כדי לעורר את תאי NK. ללא תאי יעד, ניתן לייחס את התוצאות והתצפיות ישירות לתאי ה- NK, בהנחה שתהליך הטיהור מוצלח.
חשוב לציין, שימוש בנוגדן שרשרת אור אנטי אנושי כדי לחצות את הנוגדן אינו מפריע לזיקה המחייבת של חלק Fc עבור FcγRIIIa, אינטראקציה המכתיבה את עוצמתהתגובה 10,11,12,13. ואכן, מחקרים הראו כי נוגדנים אפוקוסילציה להגדיל ADCC בשל הזיקה המוגברת שלהם FcγRIIIa10,11,12,13. מחקרים מאוחרים יותר הראו כי זיקה מוגברת זו אינה מושפעת משרשרת האור האנטי-אנושית תחליף נוגדנים משני וניתן להשתמש בה כדי ללמוד את הבסיס ל- ADCC8מוגבר . כדי להבטיח שתא ה-NK מגורה באמצעות קישור צולב של הנוגדן, יש לכלול שני פקדים שליליים: 1) נוגדן טיפולי רק ללא נוגדן המשני של שרשרת האור האנטי-אנושית, ו-2) נוגדן שרשרת האור המשני נגד בני אדם בלבד. בשני המקרים, אין ליצור פונקציית איתות או אפקט.
שיטה זו מספקת גם גמישות לחקר ההשפעות של נוגדנים טיפוליים על מעכבי מולקולות קטנות. ניתן להוסיף את המדכא לפני הצלבה עם הנוגדן המשני, כך שלמשוכב יש זמן לתקוף את מטרתו. עם זאת, מחקרים צריכים להתבצע כדי לקבוע את הזמן האופטימלי של טיפול מקדים מעכב; לכן, המדכא יש השפעה מקסימלית על גירוי. עם זאת, החוקרים עשויים גם לבחור ללמוד את ההשפעות של מעכב לאחר גירוי. במקרה זה, המעכב עשוי להתווסף לאחר crosslinking כדי ללמוד כיצד הוא משפיע על אותות ותהליכים שכבר נוצרו. יחד, השיטה המתוארת כאן מספקת גמישות מקסימלית בחקר ההשפעות הקומבינטוריות של מעכבי מולקולות קטנות שונות עם נוגדנים טיפוליים.
כאמור, מגוון של קריאות ניתן לבצע לאחר גירוי. סופג מערבי יכול להתבצע כדי ללמוד איתות באמצעות SDS-PAGE ומערכות העברת ממברנה מספקים שונים. באופן דומה, ניתן להעריך ביטוי גנים גם בשיטות מיצוי RNA שונות, ריאגנטים של שעתוק הפוך וכלי ביטוי גנים. לבסוף, כתמים עבור חלבון תאי או חוץ תאי יכול להתבצע גם שבו דגימות ניתן לנתח באמצעות ציטומטרים זרימה שונים. עבור כתמי ציטוקינים תאיים ו- CD107a (שלב 3.4, אשר ניתן להעריך בו זמנית), יש להוסיף מונסין ו / או ברפלדין A כדי למקסם אותות. השתמשנו בפלטפורמות שונות עבור כל מטרה ניסיונית ועדיין ראינו תוצאות דומות. לכן, ניתן להשלים את השיטה עם ריאגנטים שונים, פלטפורמות, מכשירים, בהתאם למחקר.
זמן הקישור המקושר לגירוי יהיה תלוי במטרה של המחקר. אם מחקרי איתות רצויים, זמן גירוי הצלבה טיפוסי הוא בין 2 דקות ל -10 דקות. pAKT, pPRAS40 ו pERK1/2 פסגות הצטברות ב 2 דקות ונעלם לאחר 10 דקות8,9. עבור מחקרים פונקציונליים (כלומר, אלה מעורבים ייצור chemokine / ציטוקינים), תאים חייב להיות מגורה לפחות 30 דקות, בהתאם ניתוח9. ניתוח ביטוי גנים גם דורש בדרך כלל 30 דקות של גירוי9. יש לנקוט זהירות בעת שימוש בביטוי גנים RANTES כהקראה, כמו ייצור MRNA RANTES אינו תלוי בהפעלה תעתיק שכן הוא כבר מאוחסן בתאים לתרגום מהיר ושחרור של חלבון על גירוי25. Degranulation, לעומת זאת, דורש לפחות 3 שעות של גירוי. למרות תצפיות כלליות אלה, החוקרים צריכים לבצע מחקרים קינטיים כדי לקבוע את זמן הגירוי האופטימלי עבור מולקולות מסוימות של עניין.
באופן דומה, חוקרים צריכים titrate נוגדן של עניין כדי לקבוע את הריכוז האופטימלי כי נוגדנים עם פרטים שונים להיקשר FcγRIIIa עם זיקות שונות, גם אם הם מאותו איזוטיפ. לדוגמה, rituximab ו trastuzumab הם שניהם איזוטיפ IgG1 אבל trastuzumab נקשר חזק יותר פולימורפיזם valine של FcγRIIIa מאשר rituximab26,27. הבדל זה זיקה עלול להוביל להבדלים תפקודיים, כגון degranulation, כפי שנצפו במחקרים שפורסמו8.
קביעת הריכוז האופטימלי חשובה גם בגלל הזיקה הנמוכה שיש לחלק ה- Fc של הנוגדן עבור FcγRIIIa. זה עלול לגרום לשטוף את הנוגדן מאז הפרוטוקול כולל שטיפה צעדים לאחר כריכה של הנוגדן לקולטן Fc. הדבר עלול להוביל לחוסר רגישות בבחונים, כפי שעולה מהאחוז הנמוך של תאים חיוביים CD107a לאחר גירוי (איור 5). עם זאת, קביעת הריכוז האופטימלי צריכה לספק ביטחון כי התוצאות אינן נובעות מחוסר רגישות. בנוסף, התאים מופעלים בבירור בבדיקות הביוכימיות והתפקודיות המשתמשות בתאים בתפזורת לעומת קריאות תאים בודדים (איור 2, איור 3, איור 6).
הפרוטוקול מוגבל גם שכן הוא אינו מחקה לחלוטין את המתרחש מבחינה פיזיולוגית. נוגדן K האנטי-אנושי המשני המשמש הוא לחקות את הקישורים הצולבים הנוצרים על ידי אנטיגן היעד לידי ביטוי בתאים. כאן, כמות רוויה של נוגדן משני מתווספת כדי ליצור את התגובה המרבית. עם זאת, תאי יעד נפרדים יבטאו רמות שונות של אנטיגן, אשר ישפיעו על קישור צולב ותגובה. נכון לעכשיו, פלטפורמה זו אינה ממוטבת כדי לחקות את ההשפעות של רמות ביטוי אנטיגן שונות.
גורם נוסף שיש לקחת בחשבון בעת ביצוע ניסויים אלה הוא שונות בין תורם לתורם בשל רקע גנטי שונה והיסטוריה חיסונית בקרב אנשים. לכן, יש לנקוט זהירות בעת השוואת תגובות תאי NK מתורמים שונים על פני אותן עבירות. באופן דומה, רק מסקנות כלליות צריכות להיעשות כאשר נעשה שימוש בתורמים שונים.
בסך הכל, השיטה המתוארת היא פלטפורמת גירוי פשוטה וגמישה לחקר אירועים מונעי נוגדנים FcγRIIIa בתאי NK. זה שימש כדי להבין טוב יותר את הבסיס עבור ADCC מוגבר ויעילות נצפתה עם נוגדנים אפוקוסילציה8. שיטה זו הועסקה גם במחקר המשלב נוגדנים טיפוליים ומעכבי מולקולות קטנות PI3K9. בנוסף, מנגנון לא ידוע בעבר לייצור chemokine וציטוקינים מוסדר על ידי pS6 זוהה9. לכן, מחקרים עתידיים באמצעות פלטפורמת איתות מלאכותית זו יכולים לרהור עוד יותר מנגנוני רגולציה עבור פונקציות אפקט מונע על ידי FcγRIIIa. זה עשוי גם לזהות מולקולות חדשות חשובות עבור מנגנונים אלה, כמו גם תפקידים חדשים עבור מולקולות ידועות.
גילויים
כל המחברים הם או היו עובדים או יועצים עבור iQ Biosciences.
תודות
המחברים מודים לג'יימס לי וכריסטופר נג על הערות ועריכה של כתב יד זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 16% פרפורמלדהיד | Thermo Fisher Scientific | 50-980-487 | |
| Alexa Fluor 488 phalloidin | Thermo Fisher Scientific | A12379 | |
| נוגדן HRP נגד עכבר | טכנולוגיות איתות תאים | 7076 | |
| מכשיר AutoMACS | Miltenyi | NK; ניתן להשתמש במכשיר | |
| בידוד אחרB-mercaptoethanol | Thermo Fisher Scientific | 21985023 | |
| בקר סרום אלבומין Fraction V, ללא חומצות שומן | Millipore Sigma | 10775835001 | |
| CD107a APC נוגדן | Biolegend | 328620 | |
| ציטוקין 30-Plex פאנל אנושי | Thermo Fisher Scientific | LHC6003M | שיטת כימוקין/ציטוקינים; ניתן להשתמש בשיטה אחרת לניתוח כימוקין/ציטוקינים |
| FBS | Hyclone | SH30071.01 | |
| עיזים אנטי אנושי וקאפה; נוגדן שרשרת קלה | Millipore Sigma | AP502 | |
| עצירת מעכב פרוטאז ופוספטאז קוקטייל | תרמו פישר מדעי | 78440 | |
| HEPES | תרמו פישר מדעי | 15630080 | |
| קיבולת גבוהה cDNA ערכת שעתוק הפוך | תרמו פישר סיינטיפיק | 4368814 | שיטת שעתוק cDNA; בשימוש על פי פרוטוקול היצרן |
| IFN-? פריימרים | תרמו פישר סיינטיפיק | Hs00989291_m1 | |
| שפופרת Leukosep (50 מ"ל חרוטי עם מחסום נקבובי) | Greiner | 227290 | |
| Lymphoprep (מדיום שיפוע צפיפות) | Stemcell | 7851 | |
| MIP-1? פריימרים | Thermo Fisher Scientific | Hs00234142_m1 | |
| MIP-1β פריימרים | Thermo Fisher Scientific | ||
| Miltenyi | 130-092-657 | NK Cell Isolation Kit; ניתן להשתמש בערכת בידוד נוספת | |
| NuPAGE 4-12% Bis-Tris Protein Gels | Thermo Fisher Scientific | ניתן להשתמש במערכת הפרדת חלבונים נוספת | |
| pAKT (S473) טכנולוגיות | איתות תאים | 4060 | |
| pERK1/2 טכנולוגיות | איתות תאים | נוגדנים 4370 | |
| pPRAS40 טכנולוגיות | איתות תאים | 13175 | |
| קרום PVDF | Thermo Fisher | ניטרוצלולוז | |
| בפריימרים RANTES | Thermo Fisher Scientific | ||
| RIPA buffer | Millipore Sigma | R0278 | |
| RPMI עם גלוטמקס | תרמו פישר סיינטיפיק | 61870 | |
| נתרן פירובט | תרמו פישר 11360070 | ||
| מדעי TNF-? פריימרים | תרמו פישר סיינטיפיק | Hs00174128_m1 | |
| טריטון X-100 | תרמו פישר סיינטיפיק | 85111 | |
| טריזול | תרמו פישר סיינטיפיק | 15596018 | שיטת בידוד RNA; בשימוש על פי פרוטוקול היצרן |
| Xcell Blot II Transfer Module | Thermo Fisher Scientific | ניתן להשתמש במערכת הפרדת חלבונים נוספת | |
| Xcell SureLock Protein Gel Electrophoresis Chamber System | Thermo Fisher Scientific | ניתן להשתמש במערכת הפרדת חלבונים אחרת | |
| &בטא;-נוגדן HRP אקטין | Abcam | ab6721 | |
| β-actin פריימרים | תרמו פישר סיינטיפיק | Hs00982282_m1 |
מקורות
- Hudis, C. A. Trastuzumab - Mechanism of Action and Use in Clinical Practice. New England Journal of Medicine. 357 (1), 39-51 (2007).
- Weiner, G. J. Rituximab: mechanism of action. Seminars inHhematology. 47 (2), 115-123 (2010).
- Orange, J. S. Formation and function of the lytic NK-cell immunological synapse. Nature Reviews Immunology. 8 (9), 713-725 (2008).
- Bonnema, J. D., Karnitz, L. M., Schoon, R. A., Abraham, R. T., Leibson, P. J. Fc receptor stimulation of phosphatidylinositol 3-kinase in natural killer cells is associated with protein kinase C-independent granule release and cell-mediated cytotoxicity. The Journal of Experimental Medicine. 180 (4), 1427-1435 (1994).
- Jiang, K., et al. Pivotal role of phosphoinositide-3 kinase in regulation of cytotoxicity in natural killer cells. Nature Immunology. 1 (5), 419-425 (2000).
- Kanakaraj, P., et al. Phosphatidylinositol-3 kinase activation induced upon Fc gamma RIIIA-ligand interaction. The Journal of Experimental Medicine. 179 (2), 551-558 (1994).
- Orange, J. S., Harris, K. E., Andzelm, M. M., Valter, M. M., Geha, R. S., Strominger, J. L. The mature activating natural killer cell immunologic synapse is formed in distinct stages. Proceedings of the National Academy of Sciences. 100 (24), 14151-14156 (2003).
- Liu, S. D., et al. Afucosylated Antibodies Increase Activation of FcγRIIIa-Dependent Signaling Components to Intensify Processes Promoting ADCC. Cancer Immunology Research. 3 (2), 173-183 (2015).
- Romeo, V., Gierke, S., Edgar, K. A., Liu, S. D. Effects of PI3K Inhibition on Afucosylated Antibody-Driven FcγRIIIa Events and Phospho-S6 Activity in NK Cells. The Journal of Immunology. 203 (1), 137-147 (2019).
- Mössner, E., et al. Increasing the efficacy of CD20 antibody therapy through the engineering of a new type II anti-CD20 antibody with enhanced direct and immune effector cell-mediated B-cell cytotoxicity. Blood. 115 (22), 4393-4402 (2010).
- Shields, R. L., et al. Lack of fucose on human IgG1 N-linked oligosaccharide improves binding to human Fcgamma RIII and antibody-dependent cellular toxicity. The Journal of Biological Chemistry. 277 (30), 26733-26740 (2002).
- Shinkawa, T., et al. The absence of fucose but not the presence of galactose or bisecting N-acetylglucosamine of human IgG1 complex-type oligosaccharides shows the critical role of enhancing antibody-dependent cellular cytotoxicity. The Journal of Biological Chemistry. 278 (5), 3466-3473 (2003).
- Junttila, T. T., et al. Superior In vivo Efficacy of Afucosylated Trastuzumab in the Treatment of HER2-Amplified Breast Cancer. Cancer Research. 70 (11), 4481-4489 (2010).
- Goede, V., et al. Obinutuzumab (GA101) plus chlorambucil (Clb) or rituximab (R) plus Clb versus Clb alone in patients with chronic lymphocytic leukemia (CLL) and preexisting medical conditions (comorbidities): Final stage 1 results of the CLL11 (BO21004) phase III trial. Journal of Clinical Oncology. 31, 15_suppl 7004(2013).
- Sehn, L. H., et al. Randomized Phase II Trial Comparing Obinutuzumab (GA101) With Rituximab in Patients with Relapsed CD20+ Indolent B-Cell Non-Hodgkin Lymphoma: Final Analysis of the GAUSS Study. Journal of Clinical Oncology. 33 (30), 3467-3474 (2015).
- Pons-Tostivint, E., Thibault, B., Guillermet-Guibert, J. Targeting PI3K Signaling in Combination Cancer Therapy. Trends in Cancer. 3 (6), 454-469 (2017).
- Engelman, J. A. Targeting PI3K signalling in cancer: opportunities, challenges and limitations. Nature Reviews. Cancer. 9 (8), 550-562 (2009).
- Fruman, D. A., Rommel, C. PI3K and cancer: lessons, challenges and opportunities. Nature Reviews. Drug Discovery. 13 (2), 140-156 (2014).
- Janku, F., Yap, T. A., Meric-Bernstam, F. Targeting the PI3K pathway in cancer: are we making headway. Nature Reviews. Clinical Oncology. 15 (5), 273-291 (2018).
- Samuels, Y., et al. High frequency of mutations of the PIK3CA gene in human cancers. Science. 304 (5670), New York, N.Y. 554(2004).
- Kanevskiy, L. M., Telford, W. G., Sapozhnikov, A. M., Kovalenko, E. I. Lipopolysaccharide induces IFN-γ production in human NK cells. Frontiers in Immunology. 4, (2013).
- Romagnani, C., et al. Activation of human NK cells by plasmacytoid dendritic cells and its modulation by CD4+ T helper cells and CD4+ CD25hi T regulatory cells. European Journal of Immunology. 35 (8), 2452-2458 (2005).
- Sivori, S., et al. CpG and double-stranded RNA trigger human NK cells by Toll-like receptors: Induction of cytokine release and cytotoxicity against tumors and dendritic cells. Proceedings of the National Academy of Sciences. 101 (27), 10116-10121 (2004).
- Hanna, J., et al. Novel Insights on Human NK Cells' Immunological Modalities Revealed by Gene Expression Profiling. The Journal of Immunology. 173 (11), 6547-6563 (2004).
- Swanson, B. J., Murakami, M., Mitchell, T. C., Kappler, J., Marrack, P. RANTES production by memory phenotype T cells is controlled by a posttranscriptional, TCR-dependent process. Immunity. 17 (5), 605-615 (2002).
- Jo, M., Kwon, H. S., Lee, K. H., Lee, J. C., Jung, S. T. Engineered aglycosylated full-length IgG Fc variants exhibiting improved FcγRIIIa binding and tumor cell clearance. mAbs. 10 (2), 278-289 (2018).
- Isoda, Y., et al. Importance of the Side Chain at Position 296 of Antibody Fc in Interactions with FcγRIIIa and Other Fcγ Receptors. PLoS ONE. 10 (10), 0140120(2015).
הדפסות חוזרות והרשאות
