מתוארים כאן היא שיטה יעילה כיצד לייצר מניות סיכוייו גבוהה ויראלי של וירוס הפטיטיס E (האוהב) כדי להדביק ביעילות תאים hepatoma. עם השיטה המוצגת, הן לא מעטפת, כמו גם חלקיקים ויראלי מעטוף ניתן לקצור ומשמש לצורך הצגת קווי תאים שונים.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
מודל תרבות התא להפקת צהבת מניות וירוס מסוג Titer גבוהה
* These authors contributed equally
במאמר זה
סיכום
תקציר
וירוס צהבת E הוא הגורם המוביל של שחמת הכבד ואת אי ספיקת כבד עם הגדלת שכיחות ברחבי העולם. וירוס ה-RNA היחיד המועבר ברובו על ידי עירויי דם, תנאים סניטריים מספיקים ומוצרי מזון מזוהמים. כדי לצאת התרופה מחוץ לתווית ריבוירין (rbv) היא הטיפול בבחירה עבור חולים רבים. למרות זאת, יש לזהות את הטיפול המסוים. עד כה, הידע על מחזור החיים האוהב והפתוגנזה הושפע באופן קשה בשל היעדר מערכת יעילה של התרבות התאית של הגוף. מערכת התרבות הסלולרית האיתנה חיונית לחקר מחזור החיים הנגיפי הכולל גם את הפתוגנזה הנגיפית. עם השיטה המתוארת כאן ניתן לייצר מגדל ויראלי של עד 3 x 10⁶ מיקוד להרכיב יחידה/ml (ffu/ml) של האדם הלא עטוף ואת עד 5 x 10⁴ ffu/ml של מעטפת. באמצעות חלקיקים אלה, ניתן להדביק מגוון של תאים של מקורות מגוונים, כולל תאים ראשוניים ואנושיים, כמו גם קווי תאים של בעלי חיים. הייצור של חלקיקי אוהב זיהומיות מפלמידים מהווה מקור אינסופי, מה שהופך את הפרוטוקול הזה ליעיל ביותר.
מבוא
צהבת E היא מחלה די מזלזל עם שכיחות גוברת ברחבי העולם. כ 20,000,000 זיהומים לגרום ליותר מ 70,000 מקרי מוות בשנה1. הסוכן הבסיסי, וירוס הפטיטיס (שלום), הוצב מחודש לאחרונה והוא מסווג כיום בתוך המשפחה Hepe, כולל הנגיף האורתופהווירוס ו piscihepevirus. האוהב של מקורות שונים מסווג בתוך מינים Orthohepevirus A-D כולל מבודד מבני אדם, חזיר, ארנבים, חולדות, ציפורים ויונקים אחרים2. בזמן הנוכחי, שמונה גנוסוגים שונים (GT) של חיובי, וירוס יחיד שנתקע RNA זוהו2. למרות שהם נבדלים בזהות הרצף שלהם, נתיבי שידור והפצה גיאוגרפית, מבנה גנומית שלהם הוא שימור מאוד. יותר ספציפי, הגנום 7.2 kbp האוהב מחולק ל 3 מסגרות קריאה הגדול פתוח (ORF1 -3). בעוד ORF1 מקודד את כל האנזימים הדרושים עבור שכפול מוצלח בתא המארח, ORF2 מקודד את חלבון הקפיסיד, והחלבון ORF3 מתפקד כערוץ יונים פונקציונלי הנדרש להרכבה ושחרור של חלקיקים זיהומיות3. שוחרר פעם לתוך הבסיס או לומן פסגה חי קיים בשני, quasienveloped ו מינים לא עטוף/עירום תלוי אם הנגיף מקורו דם או צואה, בהתאמה4,5.
בעוד GT1 ו GT2 נמצאים בעיקר במדינות מתפתחות רק מדביק את בני האדם6 דרך הדרך הצואה אוראלי, GT3, GT4 ו GT7 מתרחשים בעיקר במדינות מפותחות1,7 עם מגוון של מינים המשרתים כמו מאגרים, למשל, חזיר8, חולדה9, עוף10,11, צבי12,,22נמייה13, בת14, ארנב15,16, בר חזיר17 ועוד הרבה יותר7,18,19, מתן ראיות של zoonosis7,20,21 בנוסף לתנאים הסניטריים מספיק23 ומוצרי מזון מזוהם12,24,25,26, העברה באמצעות עירוי דם ושתילת איברים ניתן גם כן27,28. אוהב הוא גורם נפוץ של שחמת הכבד וכישלון הכבד29 במיוחד בחולים עם מחלת הכבד הקיימים מראש, אנשים בסיכון חיסוני (גנוטיפ 3, 4 ו 7) ונשים הרות (גנוטיפ 1). של הערה, יש גם ביטויים מחוץ לכבד כגון מחלה המטפאות30,31,32, הפרעות נוירולוגיות33 ופציעה הכליה34.
עד כה, התרופה מחוץ לתווית ריבוירין (rbv) היא הטיפול בבחירה עבור חולים רבים נגועים35,36. עם זאת, דווח על מקרים של כישלון הטיפול והתוצאות הרפואיות העניות לטווח הארוך דווחו. כישלון הטיפול נקשר מוטגנזה ויראלית ומוגברת טרוגניות ויראלי בחולים37נגועים באופןכרוני 37,38,39. להפך, האחרונה רטרוספקטיבי האירופי הכנס למחקר לא היה מסוגל לתאם פולימונאז מוטציות לכשל הטיפול RBV40. בתצפיות קליניות ובניסויים מחוץ למבחנה, אינטרפרון41,42,43, sofosbuvir44,45, מלחי אבץ46 ו-סילברול47,48 הראו גם אפקטים אנטי-ויראליים. למרות זאת, טיפול מסוים בנושא החיים נותר להימצא, והוא מושפע מחוסר הידע על מחזור חיי החיות והפתוגנזה שלה. לפיכך, מערכת תרבות תא חזקה למחקרים וירולוגיים ופיתוח תרופות אנטי-ויראליות חדשות, נחוצה בדחיפות49.
למרבה הצער, כמו וירוסים אחרים הפטיטיס, כלומר, קשה להפיץ בקווי התא קונבנציונאלי בדרך כלל מתקדם לאט מאוד מוביל ויראלי נמוך עומסים. אף על פי כן, קבוצות מסוימות הצליחו להגביר את העומסים ויראלי על ידי הדור של קו התא subclones50 או התאמה של תוספי מדיה51. לאחרונה הדור של cdna שיבוטים52 ו עיבוד של המטופל הראשי מבודד על ידי passaging53,54 הפצת האוהב משופרת נוסף בתרבות התא55. בפרוטוקול זה, השתמשנו הגנום של תרבות התא הותאם מאמץ Kernow-C1 (המכונה p6_WT)54 ו מוטציה זן מחסה מוטציה שיפור שכפול (המכונה p6_G1634R)37. Kernow-C1 הוא זן הנפוץ ביותר בתרבות תא מאוהב והוא מסוגל לייצר עומסים ויראלי גבוהה. על ידי הערכת ויראלי מספרים העתק RNA, שכפול האוהב יכול להיות מנוטרים בתוך מבחנה. עם זאת, טכניקות אלה אינן מאפשרות הערכה של מספר החלקיקים הזיהומיות המיוצרים. לכן, יש לנו הקימה מודלובורנציה כתמים כדי לקבוע מיקוד ויוצרים יחידות (FFU/mL).
השיטה המתוארת כאן56 יכולה לשמש להפקת חלקיקים ויראליים מדבקים באורך מלא, המסוגלים להדביק מגוון סוגי תאים ממקורות שונים, כולל תאים ראשוניים וקווי תאים. זהו תנאי מוקדם בסיסי לפענח היבטים חשובים של זיהום והטרוריזם. אין צורך בחיסונים. בדרך כלל מוגבלים בחולים הייצור של חלקיקי אוהב זיהומיות מפלמידים מהווה מקור אינסופי, מה שהופך פרוטוקול זה זהובה יעיל. בנוסף, מערכת זו יכולה לשמש עבור הגנטיקה הפוכה המאפשרת את המחקר של שינוי הגנום מזוהה vivo ואת השפעתם על שכפול וכושר. טכניקה זו גוברת על מגבלות רבות, ויכולה לסלול את הדרך להתפתחות הסמים, ללימודי מוטגנזה ולהערכת אינטראקציות של מארחי וירוסים כגון מגבלות או מקדמי כניסה.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
הערה: כל הניסויים מתבצעים תחת תנאי BSL-2. כל החומרים שנכנסים במגע עם הפטיטיס וירוס RNA או וירוס זיהומיות יש לשטוף כראוי עם 4% Kohrsolin FF ממיכל פסולת בתוך המכסה לפני לסילוק.
1. הכנה פלסמיד
- אינוהחסן 200 mL ליברות מדיום המכיל 100 μg/mL אמפיצילין עם השתנה הJM109 coli שילוב של קידוד פלאבין באורך מלא Gt3 Kernow-C1p6 רצף (PBLUESCRIPT_SK_HEVP6 [JQ679013]54 או pBluescript_SK_HEVp6-G1634R37). דגירה של 16 h ב 37 ° צ' תחת עצבנות קבוע (170 rpm).
הערה: בידוד פלפריאני בוצע באמצעות ערכת הוצאת פלסמיד (ראה טבלת חומרים). - בעקבות הפרוטוקול מייצרת, ספין 200 mL של תרבות לילה ב 6,000 x g ו-4 ° צ' עבור 10 דקות ולמחוק את הסופרנטאנט. הגלולה החיידקית יכולה להיות קפואה ומאוחסנת ב-20 ° c.
- השהה מחדש את הגלולה החיידקית ב-4 מ ל של מאגר Resuspend על-ידי ליטוף למעלה ולמטה עם פיפטה באורך 10 מ ל ו פיפטה. . בנוסף, מערבולת בקפדנות
- הוסף 4 מ ל של מאגר לליזה קדם-שחומם (30-40 ° c). היפוך בעדינות עבור מספר פעמים ו-דגירה בטמפרטורת החדר (RT) עבור 5 דקות.
- הוסף 4.8 mL של ניטרול מאגר, להפוך בעדינות ולוודא כי lysate היא לנטרל ככמת (ראה תיאור של היצרן). ואז צנטריפוגה ב 11,000 x g ו 4 ° צ' עבור 20 דקות.
- מקום 2 ס"מ x 2 ס מ פיסת לחשוב בתוך טיפ 1 ml ללא מסנן, טען מחדש, למטה ולנטרל supernatant ב 10 ml סרולוגית, להוסיף טיפ ml 1 עם לחשוב על קצה של הצנרת סרולוגית ולסנן supernatant ב חדש 50 mL צינור.
הערה: ניתן לאחסן את הסופרנטאנט ב -4 ° c עד 30 דקות במידת הצורך. - בכמה צעדים להחיל 750 μL של supernatant מסוננים על סך של 4 עמודות מסנן (שסופקו בערכה) ו צנטריפוגה ב 11,000 x g עבור 30 s. התעלם מהזרימה וחזור על רצף זה עד להחלת כל הסופרנטאנט על עמודות הסינון.
- שטוף כל עמודת מסנן פעמיים עם 500 μL של prewarmed (50 ° c) לשטוף מאגר AW ב 11,000 x g עבור 30 s ולהשליך את הזרימה-דרך לאחר מכן.
- לשטוף כל עמודת מסנן עם 600 μL של לשטוף מאגר A4 על ידי תפרידו ב 11,000 x g עבור 30 s. למחוק את הזרימה-through ולייבש את עמודות הסינון על ידי צנטריפוגה ב 11,000 x g עבור 2 דקות.
- העבר את הדנ א הפלשני מכל עמודת מסנן על-ידי העברת 60 μL של מאגר הימנעות אל מרכז עמודות הסינון. מודטה עבור 1 דקות ב RT ו צנטריפוגה ב 11,000 x g עבור 1 דקות.
- לשלב משחרתים ולמדוד את הריכוז של ה-DNA המחולצים שחולצו באמצעות ספקטרוסקופיה.
2. טיהור לינריזציה ובדיקת דנ א

איור 1: התקנה סכמטית של הכיוונון הפלסטי וטיהור ה-DNA. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
הערה: שינלון מגביר את תפוקת ה-RNA במהלך תמלול מחוץ למבחנה (שלב 3)
- כדי לשנות את ה-DNA באמצע (איור 1) לערבב 10 μg של ה-dna תבנית (שחולצו בשלב 1), 10 μl של המאגר, 2 Μl של mlui ולהתאים לנפח של 100 μl עם H2O.
- מודלת עבור 1 h ב 37 ° צ' ולאשר שינלון של הפלאמארמיד על ידי האלקטרופורזה ג'ל ג ' ל (g., לטעון ללא מתעכל ו-DNA מתעכל [1 μL של דנ א כל] על 1% agarose ג'ל ולהפעיל אלקטרופורזה ב 120 V קבוע הנוכחי).
- בעקבות פרוטוקול היצרנים עבור חילוץ ה-DNA (ראה טבלת חומרים, איור 1), לערבב 500 μl של מאגר כריכה, המסופקים בערכה, עם 100 ΜL של דנ א לינייתי. החל את המדגם על עמודת מסנן, ו צנטריפוגה ב 17,800 x g עבור 30 s. למחוק את הזרימה-through ולמקם את עמודות המסנן חזרה באותו צינור.
- שטוף את עמודת המסנן על-ידי הוספת 650 μL של מאגר כביסה צנטריפוגה ב 17,800 x g עבור 30 s. למחוק את הזרימה-through ולמקם את עמודת המסנן חזרה באותה צינורית. כדי להסיר את שרידי מאגר לשטוף, צנטריפוגה יבש ב 17,800 x g עבור 60 s ולמקם כל עמודת מסנן ב נקי 1.5 mL שפופרת מיקרוצנטריפוגה לאחר מכן.
- ד. נ. א על ידי העברת 60 μL של טרום התחממות H2O (PCR כיתה, 70 ° c) למרכז המסנן. דגירה עבור 1 דקות ב 70 ° צ' ו צנטריפוגה ב 18,000 x g עבור 1 דקות. למדוד את הריכוז של ה-DNA מטוהרים באמצעות ספקטרוסקופיה.
הערה: מאחסנים דנ א ב-20 ° c עד לתמלול.
3. שעתוק מחוץ גופית של גנוטיפ באורך מלא 3 p6 DNA ו-RNA טיהור
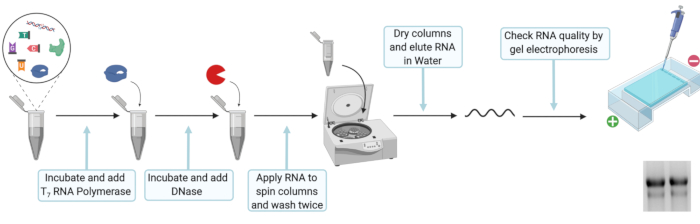
איור 2: התקנה סכמטית של שעתוק החוץ והטיהור של RNA. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
הערה: בתמלול מחוץ לגופית יש צורך לייצר ויראלי RNA גנומית מ-DNA פלמיד.
- עבור בתמלול שעתוק מבחנה 20 μl של מאגר תמלול 5x T7, 10 מ"מ dtt, 100 U של מעכב ריבונוקלאז, 25 מ"מ ATP, ctp, ו-utp, 12.5 mm gtp, 5 מ"מ ribo מ7G כובע אנלוגי, 2 μg של תבנית DNA לליניארית ו 80 U של T7 RNA פולימראז. מילוי עד 100 μl עם נוקלאז חינם H2O, מערבבים היטב את הדגירה עבור 2 H ב 37 ° c.
הערה: האחסון לטווח קצר ב-20 ° c אפשרי לאחר שלב 3.1 3.1.2.- הוסף 2 μL של T7 RNA פולימראז, מערבבים היטב, מארג עבור אחר 2 h ב 37 ° c.
- כדי לעכל את התבנית ה-DNA הראשונית, להוסיף 7.5 μL של DNase (RNase חינם, 1 U/μL), לערבב היטב ומעכב 30 דקות ב 37 ° c.
הערה: לנקות את כל המשטחים והפיפטות עם משטח decontaminant עבור RNase כאשר עובדים עם RNA כדי למנוע השפלה. כמו כן, ודא כי כל צינורות התגובה הם RNase-חינם וסטרילי. השתמש רק עצות עם מסננים לדלל אך ורק עם RNase-ללא מים נקיים וסטרילי.
- בעקבות פרוטוקול הייצור עבור מיצוי RNA (ראה טבלת חומרים, איור 2), להכין מראש מאגר לוליזיס ו 100% אתנול על ידי ערבוב 330 μl של מאגר לליזה ו 330 μl של 100% אתנול עבור כל התגובה שעתוק מחוץ גופית. הוסף 660 μL של מאגר לוליזיס-אתנול מראשות x כדי 110 μL של RNA ו מערבולת. לטעון מדגם על עמודת מסנן וצנטריפוגה ב 8000 x g עבור 30 s. למחוק את הזרימה ולמקם את עמודת המסנן חזרה באותה צינורית.
- להוסיף 600 μL של מאגר לשטוף צנטריפוגה ב 8000 x g עבור 30 s. לבטל את הזרימה ולמקם את עמודת המסנן בחזרה באותה צינורית. הוסף 350 μL של מאגר לשטוף צנטריפוגה ב 8000 x g עבור 2 דקות כדי להסיר את המאגר לשטוף שיורית. מקם כל עמודת מסנן בשפופרת מיקרוצנטריפוגה נקיה 1.5 mL. פתח את המכסה של עמודת המסנן ותן לעמודה להתייבש במשך 3 דקות.
- אליוט RNA על ידי הצבת 50 μL של RNase בחינם H2O לתוך מרכז עמודת המסנן. דגירה עבור 1 דקות ב RT ו subsequentially צנטריפוגה ב 8,000 x g עבור 1 דקות. בדוק שלמות RNA ידי טעינת 1 μl של rna על ג'ל agarose ולמדוד את הריכוז של rna שחולצו באמצעות ספקטרוסקופיה.
הערה: מאגר רנ א at-80 ° צ' עד אלקטרופורציה והפשרת RNA באופן בלעדי על הקרח כדי למנוע השפלה.
4. הכנת תאי HepG2 לתרבות התאים הנגזרת מתעשיית החברה
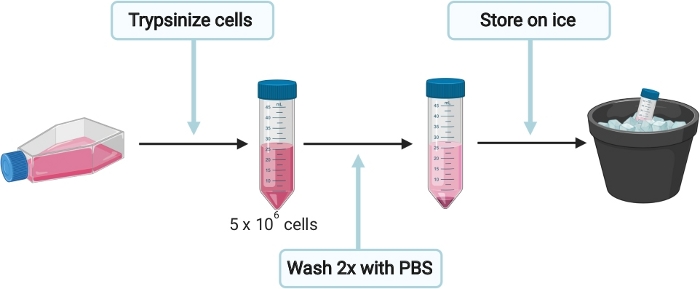
איור 3: התקנה סכמטית להכנת תאי HepG2 עבור תרבות התא הנגזרת מייצור החברה. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
הערה: כדי למנוע זיהום, הכנת תאים, אלקטרופורציה, זיהום, קצירת וקיבוע התא בוצעו בתנאים סטריליים במתקן ברמה אבטחה טיחות 2. מדרגות דגירה ב 37 ° c המערבות תאים הושלמו בחממה 5% CO2 .
- כדי להכין תאים HepG2 עבור הפקה של חברת החברה (איור 3), תאי הזרע במדיום שונה ביותר של dulbecco של הנשר (dmem) (ראה טבלה 1) על הקולגן 15 ס מ (לראות שולחן 1, מסנן סטרילי-חומצה אצטית לערבב דרך 0.2 יקרומטר רשת לפני הוספת קולגן) מצופה התרבות. מודטה בשעה 37 ° צ' עד התאים הם 90% שוטפת.
הערה: לכל 15 ס מ מנה המכילה 90% תאים בעלי שוטפת ייצרו מספיק תאים עד 4 אלקטרופורציה. - להסיר בעדינות את המדיום מן הלוח ולשטוף את התאים פעם אחת עם 10 מ ל של 1x PBS. טריזיליזציה של תאים על-ידי הוספת 3 מ ל של 0.05% טריפסין-EDTA אל התאים והדגירה ב-37 ° צ' עד שהתאים מנותקים לחלוטין. השהה את התאים מחדש ב-10 mL DMEM דיום להשלים ולהעביר את ההשעיה התא לתוך צינור 50 mL. קבע את מספר התאים הכולל.
- מאז כל אלקטרופורציה דורש 5 x 10⁶ תאים, להעביר את הנפח המתאים בצינור חדש 50 mL ולמלא עד לפחות 35 mL עם 1X PBS. בתאי צנטריפוגה ב 200 x g עבור 5 דקות ובזהירות למחוק את supernatant מבלי להפריע את הגלולה התא.
- לשטוף את התאים שוב עם 35 mL של 1x PBS ב 200 x g עבור 5 דקות. מקום תאים על הקרח ולא להסיר 1X PBS עדיין, כדי לשמור על התאים בהשעיה.
5. אלקטרופורציה של תאי HepG2
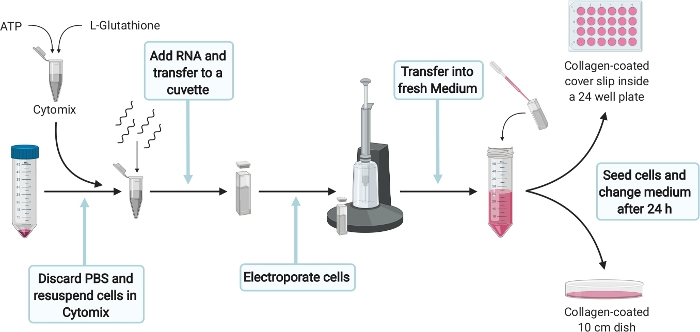
איור 4: מלכודת ניסיונית סכמטית לאלקטרופורציה של תאי HepG2. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
- עבור אלקטרופורציה של HepG2 תאים (איור 4) להכין 400 Μl של cytomix להשלים את האלקטרופורציה על ידי השלמת 384 μl של cytomix (לראות את שולחן 1) עם ATP 2 מ"מ ו 5 מ"מ גלוטתיון. הכינו מיד לפני השימוש והניחו ישירות על הקרח.
הערה: ביצוע נכון אך מהיר של השלבים הבאים הוא קריטי. לכן, ודא שהכול מוכן כראוי. - הסר בזהירות את ה-PBS 1x מבלי להפריע את הגלולה תא משלב 4.4. השהה מחדש 5 x 10⁶ תאים ב 400 μl של Cytomix השלם ולהוסיף 5 ΜG RNA משלב 3.2.2. להעביר את הפתרון לתוך קובט 4 מ"מ והדופק פעם אחת עם 975 μF, 270 V עבור 20 ms עם מערכת אלקטרופורציה.
- לאחר העברת התאים במהירות האפשרית עם מסכת פסטר לתוך 11 מ ג השלם לכל אלקטרופורציה.
הערה: כדי לוודא ש-RNA מבוצע בהצלחה באמצעות מעבר לתאי HepG2, בקרת העברה (TC) תתבצע. תעריפי ההעברה הצפויים משתנים בין 40-60% מתאים ORF2-חיוביים.
- לאחר העברת התאים במהירות האפשרית עם מסכת פסטר לתוך 11 מ ג השלם לכל אלקטרופורציה.
- העברה 10 מ ל של תאים electroporated לתוך מאכל 10 ס"מ התרבות מצופה קולגן. הוסיפו 1.3 x 10⁵ תאים הנושאים היחסית (300 μl) לבאר אחת של צלחת מצופה קולגן הנושאת מכסה כיסוי (בהמשך משמש בקרת העברה). פזר את התאים באופן שווה ו-דגירה ב 37 ° c.
- לאחר 24 שעות, לשנות את המדיום של 10 ס מ הצלחת ולהחליף עם השלמת 10 mL מחדש. אין לשנות את המדיום של בקרת ההעברה. מודטה לעוד 6 ימים ב 37 ° c.
- להפסיק את השליטה על המשגר ב 24 הצלחת 5-7 d לכתוב אלקטרופורציה בהתאם לצפיפות התא על ידי המשך עם הפרוטוקול הimmunofluorescence כתמים (שלב 8). יעילות ההעברה מחושבת על-ידי ספירת מספר התאים החיוביים ORF2 מנורמלות למספר הכולל של תאים.
6. קציר של חברת הפנים והחילוץ
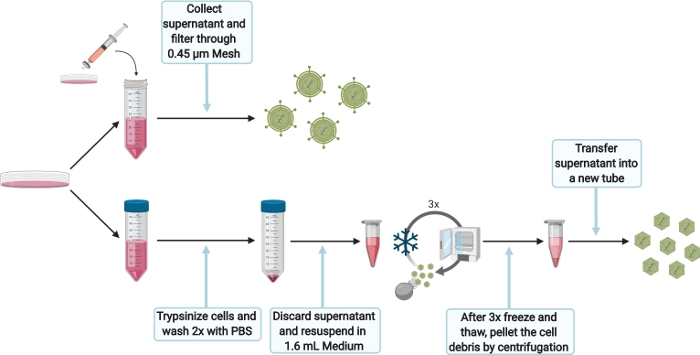
איור 5: התקנה סכמטית לצורך קצירת המידע הפנים-מתוך. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
- כדי להסיר את היבול (איור 5), לסנן את supernatant, שהתקבל מן 10 הצלחת ס מ לאחר 6 ימים (שלב 5.3.1), דרך רשת 0.45 יקרומטר להסרת כל פסולת תא. חנות מכולת שנאספה בשנת 4 ° c עבור זיהום באותו יום, אחרת לחנות ב-80 ° c.
- כדי לקצור את היבול (איור 5), שטוף תאים עם 1X PBS ו טריסיזציה על-ידי הוספת 1.5 mL של 0.05% טריפסין-edta. דגירה ב 37 ° צ' עד התאים מנותקים לחלוטין. הוסף 10 מ ל של DMEM להשלים, לשטוף את הצלחת לנתק תאים והעברת תאים מושעה לתוך שפופרת 50 mL. שטוף את התאים פעמיים עם PBS. צנטריפוגה ב 200 x g עבור 5 דקות.
- למחוק את הסופרנטאנט ולהשעות מחדש את הגלולה בתא ב 1.6 mL של DMEM להשלמת האלקטרופורציה. להעביר את ההשעיה התא לתוך צינור 2 mL התגובה.
הערה: אין להשתמש באמצעי אחסון גדולים יותר כפי שהוא יקטין באופן דרמטי עומסים ויראליות. - הקפא (בחנקן נוזלי) והפשרת תאים. חזור על רצף זה 3 פעמים.
הערה: אין לבריכה יותר מאשר אלקטרופורציה אחת (1.6 mL) עבור 3 מחזורי הקפאה והפשרה כמו יעילות הפירוק יהיה לקוי. אל וורטקס השעיית התא בין מחזורי. הקפד להפשיר את ההשעיה של התא לאט (למשל, טמפרטורת החדר או על הקרח) כדי למקסם את העומסים ויראלי. - מהירות גבוהה צנטריפוגה את התאים lysed עבור 10 דקות ב 10,000 x g כדי להפריד את השברים התא. . העבר את הסופרנטנט בשפופרת חדשה , קח את הסופרנטנט לזיהום. אחרת תאחסן ב-80 ° c
- באופן אופציונלי, למקד את התוספת-ו תאיים באמצעות מרכז להגדיל את העומסים ויראלי (על פי פרוטוקול של היצרן).
- למחוק את הסופרנטאנט ולהשעות מחדש את הגלולה בתא ב 1.6 mL של DMEM להשלמת האלקטרופורציה. להעביר את ההשעיה התא לתוך צינור 2 mL התגובה.
7. זיהום של תאים HepG2/C3A עם חברת הפנים והחילוץ

איור 6: התקנה סכמטית לזיהום של HepG2/C3A תאים עם הפנים והחילוץ. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
הערה: הזיהום של תאים HepG2/C3A יבטיח כי חלקיקים זיהומיות יוצרו. בנוסף, את הטיטור של המרכז הבין-תאיים והמ, משתמשים כדי לחשב את מסכת הווירוסים ב-FFU/mL. זה מאוחר יותר נקרא בקרת זיהום (IC).
- כדי להכין תאים HepG2/C3A עבור זיהום של חברת המידע (איור 6), מדיום מינימלי חיוני מינימלית (הגברת) השלם (ראה טבלה 1) עד 37 ° c.
- זרע 2 x 10⁴ תאים/גם ב 100 μl על קולגן מצופה 96 היטב microtiter לוחית יום אחד לפני שלב 6. הקפד למלא את הבארות החיצוני עם ה-PBS 1x כדי למנוע אידוי של המדיום בתוך הפנימי 60 בארות. מודטה ב 37 ° c עבור 24 שעות.
- להדביק עם החילוץ באמצעות הוספת 50 μL של סופרנטנט (משלב 6.1) לתאי HepG2/C3A שנזרע ביום שלפני. מערבבים היטב על ידי ליטוף למעלה ולמטה ו לדלל באופן סדרתי שש פעמים 1:3 על ידי העברת 50 μL לתוך הבאר הבא. בצע כפילויות של דילול טורי עבור שכפול טכני.
- הדבק עם הקשר הבין-יומי על ידי הוספת 25 μL supernatant (משלב 6.2.3) לתאי HepG2/C3A שנזרע יום לפני. מערבבים היטב על ידי ליטוף למעלה ולמטה ו לדלל באופן סדרתי שש פעמים 1:5 על ידי העברת 25 μL לתוך הבאר הבא. בצע דילול סדרתי כפילויות עבור שכפול טכני.
- לאחר 7 ד ב 37 מעלות צלזיוס לעצור את הזיהום על ידי המשך עם הפרוטוקול האימונולואואורונסורבית (שלב 8).
8. כתמים אימונולואורוסנס של הדלקת ובקרת זיהום
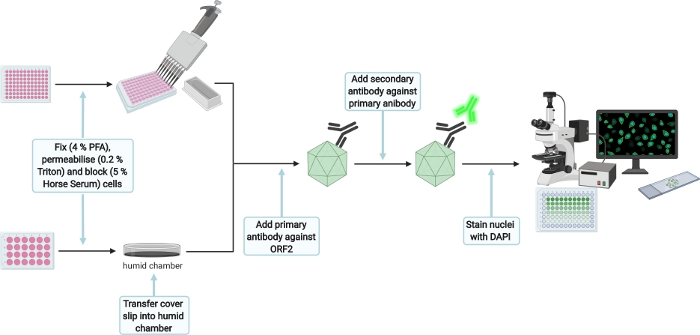
איור 7: מלכודת ניסיונית סכמטית לצביעת הזיהום ובקרת הדלקת. אנא לחץ כאן כדי להציג גירסה גדולה יותר של איור זה.
- עבור מכתים (איור 7), לשטוף 3x עם 1X PBS ולתקן תאים על ידי חילוק 350 μl (בקרת העברה [TC]) או 50 μl (בקרת זיהום [IC]) של 4% קיבעון פתרון לכל טוב. דגירה של 15 דקות ב RT ו לשטוף בזהירות פעמיים עם PBS 1x לאחר מכן.
הערה: ניתן להשהות את הפרוטוקול כאן לבקרת ההעברה עד לפגיעה בתאים HepG2/C3A מופסקת גם כן. לאחסן צלחת היטב ב 4 ° c. גם לאטום עם parafilm כדי למנוע אידוי. - תאים מחלחלים על-ידי הוספת 350 μL (TC) או 50 μL (IC) של 0.2% טריטון X-100 (ב-1 × PBS) עבור 5 דקות ב-RT. לאחר מכן לשטוף בזהירות פעמיים עם PBS 1x ולחסום עם 350 μL (TC) או 50 μL (IC) של 5% סרום סוסים (ב-1x PBS) עבור 1 h ב RT תחת עצבנות קבוע על שייקר מסלולית (30 סל ד).
הערה: הכינו מיכל פלסטיק קטן (30 מ"מ) על ידי הצבת רקמה לחה בפנים ושכבת סרט פרפין על גבי, יצירת תא לח. לאחר מכן להעביר את הכיסוי TC לכסות כלפי מעלה על הסרט פרפין. השלבים הבאים עבור ה-TC יבוצעו בחדר הלח. - הוסף 70 μL (TC) או 25 μL (IC) של הנוגדן העיקרי anti-ORF2 8282 (הארנב הספציפי-החיסון הסגולי-סרום, 1:5000 ב 5% סרום הסוס) לילה ו הדגירה ב 4 ° c תחת עצבנות מתמדת על שייקר מסלולית (30 סל ד).
- לשטוף בזהירות פעמיים עם PBS 1x ולהוסיף 70 μL (TC) או 25 μL (IC) של הנוגדן המשני עז נגד ארנב 488 (1:1000 ב 5% סרום סוס). מודטה עבור 1 h תחת עצבנות מתמדת על שייקר מסלולית (30 סל ד) בחושך. שוב, לשטוף בזהירות פעמיים עם ה-PBS 1x
- הוסף 70 μL (TC) או 25 μL (IC) של DAPI (1:10000 ב H2O) ו דגירה עבור 1 דקות. לשטוף בזהירות פעמיים עם H2O. להוציא את שובר הכיסוי מתא לח, המכסה לכסות להחליק עם 6 μL של ההרכבה מגיב הפוך על שקופית כיסוי (רק עבור TC) ולתת הרכבה מגיב יבש עבור 16 h ב RT בחושך. חנות IC במים עד הדמיה לאטום את הצלחת עם סרט פרפין כדי למנוע ייבוש עקב אידוי.
- קח תמונות כדי לאשר. העברה מוצלחת וזיהום
הערה: תוצאות דומות התקבלו באמצעות מסחרית anti-ORF2 1E6 נוגדן57 (1:200 ב 5% סרום סוס) ואת החמור נוגדן משני נגד העכבר (1:1000 ב 5% סרום סוס)
9. קביעת FFU
הערה: FFU אחד מוגדר כתאים ORF2-חיוביים אחד או יותר המופרדים מ-FFU אחר על-ידי לפחות שלושה תאים שליליים.
- לקבלת מORF2 מתחילים לספור את כל וקדי חיובי של שתי הבארות בשתי הדילול הנמוך ביותר. יש לספור מספר כולל של ארבע בארות. ניתן לחשב את המיקוד הכולל יחידות (FFU) לכל מיליליטר במשוואה הבאה:
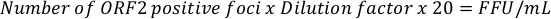
הערה: הטיטרים צפויים משתנים בין 102 ל-5 x 10⁴ ffu/mL. - עבור חברת המידע התאיים להתחיל לספור את כל ORF2-חיוביים וקדי בבארות שבו בין 50 ל 100 וקדי הם נצפו. בנוסף, ספור את שתי הבארות בדילול הגבוה הבא. יש לספור מספר כולל של ארבע בארות. ניתן לחשב את המיקוד הכולל יחידות (FFU) לכל מיליליטר במשוואה הבאה:
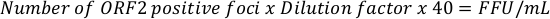
הערה: היציאות הצפויות משתנות בין10 ל- 3 x 10⁶ ffu/mL. הגורמים 20x ו 40x משמשים לשער את מספר FFU לכל 50 μL ו 25 μL ל 1 mL וניתן להתאים בהתאם.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
בפרוטוקול זה, אנו מתארים את ההפקה של חברת הייטק מדבקת. הצעד הראשון הוא לבודד את ה-DNA פלמיד (pBluescript_SK_HEVp654 ו-PBLUESCRIPT_SK_HEVP6-G1634R37, איור 8a), אשר לאחר מכן הוא לאחר לבידוד על ידי הגבלת העיכול ומטוהר עבור תמלול מתורבת (איור 1). ניתן לאמת לינלון מוצלח על ידי השוואת ה-DNA הבלתי מתעכל ל-dna של מתעכל באמצעות אלקטרופורזה ג'ל. בנוסף לשינוי גודל, רק להקת DNA אחת צריכה להיות גלויה המייצגת את הצורה הליניארית....
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
החל עם ההכנה הפלסטיות, התשואות DNA צריך לחרוג 150 ng/μL כדי להיות מסוגל לבצע לינריזציה מרובים מן המלאי באותו פלסטלינה, אשר ממזער את הסיכון של חיידקים המושרה מוטגנזה של רצפי הגנום המכריע. יתר על כן, חשוב לבדוק את תקציר ההגבלה עבור שורה מלאה פלריזציה על ידי ג'ל אלקטרופורזה (איור 8b). העדר דנ א לינבית הפלסטיות יגרום להגברה מעגל הגורם לתמלול באמצעות מבחנה כדי להיות פחות יעיל. בנוסף, שלמות RNA צריך להיות מאושר כדי להעריך את השפע של RNases בתוך המדגם (איור 8c). יש לשק...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
. למחברים אין מה לגלות
תודות
אנחנו אסירי תודה לסוזן אמרסון. על וירוס הפטיטיס p6 שיבוט מערכת החיסון העצמי הספציפית של הארנב מסופקת באדיבות ריינר אולריך, מכון פרידריך לופלר, גרמניה. כמו כן, אנו מודים לכל חברי המחלקה לוירולוגיה מולקולרית ורפואית באוניברסיטת רוהר בוכום על תמיכתם ושיוריהם. דמויות 1-7 נוצרו עם BioRender.com.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.45 ומיקרו; m mesh | Sarstedt | 83.1826 | קציר וירוס חוץ-תאי |
| 4% היסטופיקס | CarlRoth | P087.4 | אימונופלואורסצנטי |
| חומצה אצטית | CarlRoth | 6755.1 | פתרון עבודה קולגן |
| Amicon Ultra-15 | Merck Millipore | UFC910024 | וירוס קצירת |
| Ampicillin | Sigma-Aldrich | A1593 | מבחר של טרנספורמציה חיידקים |
| ATP | Roche | 11140965001 | in vitro שעתוק ואלקטרופורציה |
| BioRender | BioRender | Figure Generation | |
| CaCl2 | Roth | 5239.2 | Cytomix |
| Collagen R solution 0.4% | סטרילי Serva | 47256.01 | תמיסת עבודה קולגן |
| CTP | Roche | 11140922001 | in vitro תמלול |
| Cuvette | Biorad | 165-2088 | Electroporation |
| DAPI | Invitrogen | D21490 | Immunofluorescence |
| DMEM | gibco | 41965-039 | תרבית תאים |
| DNAse | Promega | M6101 | in vitro תמלול |
| DTT | Promega | כלול בתעתיק P2077 | in vitro |
| EGTA | Roth | 3054.3 | Cytomix |
| Escherichia coli JM109 | Promega | L2005 | טרנספורמציה |
| סרום בקר עוברי | gibco | 10270106 | תרבית תאים |
| Fluoromount | SouthernBiotech | 0100-01 | אימונופלואורסצנציה |
| מערכת אלקטרופורציה של GenePulser Xcell | BioRad | 1652660 | אלקטרופורציה |
| Gentamycin | gibco | 15710049 | תרבית תאים |
| GTP | Roche | 11140957001 | in vitro שעתוק |
| H2O | בראון | 184238001 | אימונופלואורסצנטי |
| Hepes | Invitrogen | 15630-03 | Cytomix |
| Horse Serum | gibco | 16050122 | Immunofluorescence |
| K2HPO4 | Roth | P749.1 | Cytomix |
| KCL | Roth | 6781.3 | Cytomix |
| KH2PO4 | Roth | 3904.2 | Cytomix |
| L-Glutamin | gibco | 25030081 | תרבית תאים |
| L-גלוטתיון מופחת | Sigma-Aldrich | G4251-5G | Cytomix |
| MEM | gibco | 31095-029 | תרבית תאים |
| MEM NEAA (100&) | gibco | 11140-035 | תרבית תאים |
| MgCl2 | Roth | 2189.2 | Cytomix |
| מיקרונפח ספקטרופוטומטר UV-Vis NanoDrop One | Thermo Fisher | ריכוז ND-ONE-W | DNA/ |
| RNA אנזים MluI NEB | R0198L | ליניאריזציה | |
| NEB מאגר NEB | כלול בליניאריזציה | ||
| R0198Lערכת פלסמיד NucleoSpin | Macherey & Nagel | 740588.250 | הכנת פלסמיד |
| ערכת ניקוי RNA NucleoSpin | Macherey & Nagel | 740948.250 | טיהור RNA |
| PBS | gibco | 70011051 | תרבית תאים |
| עט/סטרפטוקוקוס | תרמו פישר | 15140122 | תרבית תאים |
| פלסמיד המקודד גנום HEV באורך מלא (p6_G1634R) | וירוס | Todt et.al | |
| פלסמיד המקודד גנום HEV באורך מלא (p6_WT) | שוקלה ואחרים. | הצטרפות GenBank מס. JQ679013 | ייצור וירוס |
| נוגדן ראשוני 1E6 | LS-Bio | C67675 | אימונופלואורסצנטי |
| נוגדן ראשוני 8282 | ריינר אולריך, מכון פרידריך לופלר, גרמניה | ||
| QIAprep Spin Miniprep Kit | Qiagen | 27106 | מיצוי DNA |
| Ribo m7G Cap אנלוגי | Promega | P1711 | in vitro |
| RNase משם | CarlRoth | A998.3 | טיהור RNA |
| RNasin (מעכב RNase) | Promega | N2515 | in vitro שעתוק |
| נוגדן משני חמור אנטי עכבר 488 | Thermo Fisher | A-21202 | אימונופלואורסצנציה |
| נוגדן משני עז נגד ארנב 488 | Thermo Fisher | A-11008 | אימונופלואורסצנציה |
| נתרן פירובאט | גיבקו | 11360070 | תרבית תאים |
| T7 RNA פולימראז | Promega | P2077 | in vitro שעתוק |
| מאגר שעתוק | Promega | כלול ב-P2077 | in vitro שעתוק |
| Triton X-100 | CarlRoth | 3051.3 | אימונופלואורסצנציה |
| טריפסין-EDTA (0.5%) | gibco | 15400054 | תרבית תאים |
| IgG gibco נמוכה במיוחד | 1921005PJ | תרבית תאים | |
| UTP | Roche | 11140949001 | in vitro שעתוק |
מקורות
- Wedemeyer, H., Pischke, S., Manns, M. P. Pathogenesis and treatment of hepatitis e virus infection. Gastroenterology. 142 (6), 1388-1397 (2012).
- Smith, D. B., et al. Proposed reference sequences for hepatitis E virus subtypes. The Journal of General Virology. 97 (3), 537-542 (2016).
- Ding, Q., et al. Hepatitis E virus ORF3 is a functional ion channel required for release of infectious particles. Proceedings of the National Academy of Sciences of the United States of America. 114 (5), 1147-1152 (2017).
- Chapuy-Regaud, S., et al. Characterization of the lipid envelope of exosome encapsulated HEV particles protected from the immune response. Biochimie. 141, 70-79 (2017).
- Yin, X., Ambardekar, C., Lu, Y., Feng, Z. Distinct Entry Mechanisms for Nonenveloped and Quasi-Enveloped Hepatitis E Viruses. Journal of Virology. 90 (8), 4232-4242 (2016).
- Khuroo, M. S., Khuroo, M. S., Khuroo, N. S. Hepatitis E: Discovery, global impact, control and cure. World Journal of Gastroenterology. 22 (31), 7030-7045 (2016).
- Rasche, A., et al. Hepatitis E Virus Infection in Dromedaries, North and East Africa, United Arab Emirates, and Pakistan, 1983-2015. Emerging Infectious Diseases. 22 (7), 1249-1252 (2016).
- Hsieh, S. Y., et al. Identity of a novel swine hepatitis E virus in Taiwan forming a monophyletic group with Taiwan isolates of human hepatitis E virus. Journal of Clinical Microbiology. 37 (12), 3828-3834 (1999).
- Johne, R., et al. Detection of a novel hepatitis E-like virus in faeces of wild rats using a nested broad-spectrum RT-PCR. The Journal of General Virology. 91, Pt 3 750-758 (2010).
- Payne, C. J., Ellis, T. M., Plant, S. L., Gregory, A. R., Wilcox, G. E. Sequence data suggests big liver and spleen disease virus (BLSV) is genetically related to hepatitis E virus. Veterinary Microbiology. 68 (1-2), 119-125 (1999).
- Haqshenas, G., Shivaprasad, H. L., Woolcock, P. R., Read, D. H., Meng, X. -J. Genetic identification and characterization of a novel virus related to human hepatitis E virus from chickens with hepatitis–splenomegaly syndrome in the United States. Journal of General Virology. 82, 2449-2462 (2001).
- Tei, S., Kitajima, N., Takahashi, K., Mishiro, S. Zoonotic transmission of hepatitis E virus from deer to human beings. The Lancet. 362 (9381), 371-373 (2003).
- Nakamura, M., et al. Hepatitis E virus infection in wild mongooses of Okinawa, Japan: Demonstration of anti-HEV antibodies and a full-genome nucleotide sequence. Hepatology Research: the Official Journal of the Japan Society of Hepatology. 34 (3), 137-140 (2006).
- Drexler, J. F., et al. Bats worldwide carry hepatitis E virus-related viruses that form a putative novel genus within the family Hepeviridae. Journal of Virology. 86 (17), 9134-9147 (2012).
- Zhao, C., et al. A novel genotype of hepatitis E virus prevalent among farmed rabbits in China. Journal of Medical Virology. 81 (8), 1371-1379 (2009).
- Lhomme, S., et al. Risk of zoonotic transmission of HEV from rabbits. Journal of Clinical Virology: the Official Publication of the Pan American Society for Clinical Virology. 58 (2), 357-362 (2013).
- Kaci, S., Nöckler, K., Johne, R. Detection of hepatitis E virus in archived German wild boar serum samples. Veterinary Microbiology. 128 (3-4), 380-385 (2008).
- Liu, B., et al. Avian hepatitis E virus infection of duck, goose, and rabbit in northwest China. Emerging Microbes & Infections. 7 (1), 76(2018).
- Raj, V. S., et al. Novel hepatitis E virus in ferrets, the Netherlands. Emerging Infectious Diseases. 18 (8), 1369-1370 (2012).
- Dong, C., et al. Restricted enzooticity of hepatitis E virus genotypes 1 to 4 in the United States. Journal of Clinical Microbiology. 49 (12), 4164-4172 (2011).
- Goens, S. D., Perdue, M. L. Hepatitis E viruses in humans and animals. Animal Health Research Reviews. 5 (2), 145-156 (2004).
- Geng, Y., Wang, Y. Transmission of Hepatitis E Virus. Advances in Experimental Medicine and Biology. 948, 89-112 (2016).
- Naik, S. R., Aggarwal, R., Salunke, P. N., Mehrotra, N. N. A large waterborne viral hepatitis E epidemic in Kanpur, India. Bulletin of the World Health Organization. 70 (5), 597-604 (1992).
- Feagins, A. R., Opriessnig, T., Guenette, D. K., Halbur, P. G., Meng, X. -J. Detection and characterization of infectious Hepatitis E virus from commercial pig livers sold in local grocery stores in the USA. The Journal of General Virology. 88, Pt 3 912-917 (2007).
- Colson, P., et al. Pig liver sausage as a source of hepatitis E virus transmission to humans. The Journal of Infectious Diseases. 202 (6), 825-834 (2010).
- Wenzel, J. J., et al. Detection of hepatitis E virus (HEV) from porcine livers in Southeastern Germany and high sequence homology to human HEV isolates. Journal of Clinical Virology: the Official Publication of the Pan American Society for Clinical Virology. 52 (1), 50-54 (2011).
- Colson, P., et al. Transfusion-associated Hepatitis E, France. Emerging Infectious Diseases. 13 (4), 648-649 (2007).
- Kamp, C., et al. Impact of hepatitis E virus testing on the safety of blood components in Germany - results of a simulation study. Vox Sanguinis. , (2018).
- Kamar, N., Dalton, H. R., Abravanel, F., Izopet, J. Hepatitis E virus infection. Clinical Microbiology Reviews. 27 (1), 116-138 (2014).
- Pischke, S., Behrendt, P., Manns, M. P., Wedemeyer, H. HEV-associated cryoglobulinaemia and extrahepatic manifestations of hepatitis E. The Lancet Infectious Diseases. 14 (8), 678-679 (2014).
- Colson, P., et al. Severe thrombocytopenia associated with acute hepatitis E virus infection. Journal of Clinical Microbiology. 46 (7), 2450-2452 (2008).
- Mishra, P., Mahapatra, M., Kumar, R., Pati, H. P. Autoimmune hemolytic anemia and erythroid hypoplasia associated with hepatitis E. Indian Journal of Gastroenterology: Official Journal of the Indian Society of Gastroenterology. 26 (4), 195-196 (2007).
- Sood, A., Midha, V., Sood, N. Guillain-Barré syndrome with acute hepatitis E. The American Journal of Gastroenterology. 95 (12), 3667-3668 (2000).
- Fousekis, F. S., Mitselos, I. V., Christodoulou, D. K. Extrahepatic manifestations of hepatitis E virus: An overview. Clinical and Molecular Hepatology. 26 (1), 16-23 (2020).
- Pischke, S., et al. Ribavirin treatment of acute and chronic hepatitis E: A single-centre experience. Liver International: Official Journal of the International Association for the Study of the Liver. 33 (5), 722(2013).
- Kamar, N., et al. Ribavirin for Chronic Hepatitis E Virus Infection in Transplant Recipients. The New England Journal of Medicine. 370, 1111-1120 (2014).
- Todt, D., et al. In vivo evidence for ribavirin-induced mutagenesis of the hepatitis E virus genome. Gut. 65, 1733-1743 (2016).
- Todt, D., Walter, S., Brown, R. J. P., Steinmann, E. Mutagenic Effects of Ribavirin on Hepatitis E Virus-Viral Extinction versus Selection of Fitness-Enhancing Mutations. Viruses. 8 (10), 8100283(2016).
- Todt, D., Meister, T. L., Steinmann, E. Hepatitis E virus treatment and ribavirin therapy: Viral mechanisms of nonresponse. Current Opinion in Virology. 32, 80-87 (2018).
- Kamar, N., et al. Ribavirin for Hepatitis E Virus Infection After Organ Transplantation: A Large European Retrospective Multicenter Study. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. , (2019).
- Kamar, N., et al. Influence of immunosuppressive therapy on the natural history of genotype 3 hepatitis-E virus infection after organ transplantation. Transplantation. 89 (3), 353-360 (2010).
- Kamar, N., et al. Pegylated interferon-alpha for treating chronic hepatitis E virus infection after liver transplantation. Clinical Infectious Diseases: An Official Publication of the Infectious Diseases Society of America. 50 (5), 30-33 (2010).
- Todt, D., et al. Antiviral Activities of Different Interferon Types and Subtypes against Hepatitis E Virus Replication. Antimicrobial Agents and Chemotherapy. 60 (4), 2132-2139 (2016).
- Dao Thi, V. L., et al. Sofosbuvir Inhibits Hepatitis E Virus Replication In Vitro and Results in an Additive Effect When Combined with Ribavirin. Gastroenterology. 150 (1), 82-85 (2016).
- van der Valk, M., Zaaijer, H. L., Kater, A. P., Schinkel, J. Sofosbuvir shows antiviral activity in a patient with chronic hepatitis E virus infection. Journal of Hepatology. 66 (1), 242-243 (2017).
- Kaushik, N., et al. Zinc Salts Block Hepatitis E Virus Replication by Inhibiting the Activity of Viral RNA-Dependent RNA Polymerase. Journal of Virology. 91 (21), (2017).
- Todt, D., et al. The natural compound silvestrol inhibits hepatitis E virus (HEV) replication in vitro and in vivo. Antiviral Research. 157, 151-158 (2018).
- Glitscher, M., et al. Inhibition of Hepatitis E Virus Spread by the Natural Compound Silvestrol. Viruses. 10 (6), 301(2018).
- Kinast, V., Burkard, T. L., Todt, D., Steinmann, E. Hepatitis E Virus Drug Development. Viruses. 11 (6), 485(2019).
- Schemmerer, M., et al. Enhanced Replication of Hepatitis E Virus Strain 47832c in an A549-Derived Subclonal Cell Line. Viruses. 8 (10), 267(2016).
- Huang, R., et al. Cell Culture of Sporadic Hepatitis E Virus in China. Clinical and Vaccine Immunology. 6 (5), 729-733 (1999).
- Emerson, S. U., et al. Recombinant hepatitis E virus genomes infectious for primates: Importance of capping and discovery of a cis-reactive element. PNAS. 98 (26), 15270-15275 (2001).
- Shukla, P., et al. Cross-species infections of cultured cells by hepatitis E virus and discovery of an infectious virus-host recombinant. Proceedings of the National Academy of Sciences of the United States of America. 108 (6), 2438-2443 (2011).
- Shukla, P., et al. Adaptation of a genotype 3 hepatitis E virus to efficient growth in cell culture depends on an inserted human gene segment acquired by recombination. Journal of Virology. 86 (10), 5697-5707 (2012).
- Meister, T. L., Bruening, J., Todt, D., Steinmann, E. Cell culture systems for the study of hepatitis E virus. Antiviral Research. 163, 34-49 (2019).
- Todt, D., et al. Robust hepatitis E virus infection and transcriptional response in human hepatocytes. Proceedings of the National Academy of Sciences of the United States of America. , (2020).
- Ankavay, M., et al. New insights into the ORF2 capsid protein, a key player of the hepatitis E virus lifecycle. Scientific Reports. 9 (1), 6243(2019).
- Schemmerer, M., Johne, R., Erl, M., Jilg, W., Wenzel, J. J. Isolation of Subtype 3c, 3e and 3f-Like Hepatitis E Virus Strains Stably Replicating to High Viral Loads in an Optimized Cell Culture System. Viruses. 11 (6), 483(2019).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
