מוצגת בדיקת משקעים חיסוניים של כרומטין (X-ChIP) כנגד סימן ההיסטון H3K4me3 עבור אורגניזם המודל Exaiptasia diaphana . הספציפיות והיעילות של הבדיקה מאושרות על ידי PCR כמותי וריצוף הדור הבא. פרוטוקול זה מאפשר חקירה מוגברת של אינטראקציות חלבון-דנ"א בשושנת הים E. diaphana.
מאמר שיטה
כרומטין משקעים חיסוניים במערכת המודל Cnidarian Exaiptasia diaphana
* These authors contributed equally
במאמר זה
סיכום
תקציר
שינויים פוסט-תרגומיים של היסטון (PTM) ושינויים אפיגנטיים אחרים מווסתים את נגישות הכרומטין של גנים למנגנון השעתוק, ובכך משפיעים על יכולתו של אורגניזם להגיב לגירויים סביבתיים. משקעים חיסוניים של כרומטין בשילוב עם ריצוף בתפוקה גבוהה (ChIP-seq) נעשה שימוש נרחב כדי לזהות ולמפות אינטראקציות חלבון-דנ"א בתחומי אפיגנטיקה וויסות גנים. עם זאת, תחום האפיגנטיקה הקנידארית נפגע בשל היעדר פרוטוקולים ישימים, בין היתר בשל התכונות הייחודיות של אורגניזמים לדוגמה שושנת הים הסימביוטית Exaiptasia diaphana, שתכולת המים הגבוהה שלה וכמויות הריר שלה חוסמות שיטות מולקולריות. כאן מוצג הליך ChIP מיוחד, המאפשר לחקור אינטראקציות חלבון-DNA בבקרת הגן E. diaphana . שלבי ההצלבה ומיצוי הכרומטין עברו אופטימיזציה למשקעים חיסוניים יעילים ולאחר מכן אומתו על ידי ביצוע ChIP באמצעות נוגדן כנגד סימן ההיסטון H3K4me3. לאחר מכן, הספציפיות והיעילות של בדיקת ChIP אושרו על ידי מדידת התפוסה היחסית של H3K4me3 סביב מספר אתרי גנים מופעלים באופן קונסטיטוטיבי באמצעות PCR כמותי ועל ידי ריצוף הדור הבא לניתוח בקנה מידה גנומי רחב. פרוטוקול ChIP ממוטב זה עבור שושנת הים הסימביוטית E. diaphana מאפשר לחקור את אינטראקציות החלבון-דנ"א המעורבות בתגובות אורגניזמים לשינויים סביבתיים המשפיעים על קנידארים סימביוטיים, כגון אלמוגים.
מבוא
דו"ח הפאנל הבין-ממשלתי לשינוי האקלים (IPCC) לשנת 2022 מדגיש כי למרות הגברת המודעות ומאמצי המיתון, גלי חום ימיים אינטנסיביים ותכופים יותר ויותר מציבים את שוניות האלמוגים בסיכון גבוה להלבנה נרחבת ולתמותה המונית בעשורים הקרובים1. על מנת לסייע במאמצי השימור והשיקום של שוניות האלמוגים, ההשפעות הנוכחיות והצפויות של התנאים הסביבתיים המשתנים על הבנטיים נחקרות ברמות ביולוגיות מרובות כדי להבין את המנגנונים הבסיסיים של תגובה ועמידות2.
זמינותם של כלי חקירה הישימים לקנידארים בנתיים חיונית להתמודדות עם אתגר זה, ופיתוח כלים אלה מחייב מאמץ אקטיבי להעברת ידע וטכנולוגיות שהוקמו בתחומים אחרים לאורגניזמים ימיים3. המכשולים לעבודה עם מיני אלמוגים רבים מקלים חלקית על ידי שימוש במערכות מודל, כגון שושנת הים Exaiptasia diaphana (המכונה בדרך כלל Aiptasia)4. שושנות ים סימביוטיות אלה, הגדלות במהירות, קלות יחסית להחזקה בתנאי מעבדה, מתרבות הן מינית והן א-מינית, וחסרות את שלד הסידן הפחמתי5. גנום הייחוסהפתוח 5 של E. diaphana מאפשר שימוש בשיטות אפיגנטיות הדורשות ריצוף. עם זאת, תכונות כגון תכולת מים גבוהה, ייצור ריר וכמויות רקמות נמוכות לאדם מהוות אתגרים להקמת פרוטוקולים הניתנים לשכפול, ובכך מרסנים את המחקר האפיגנטי על E. diaphana ועל cnidarians אחרים עם תכונות דומות.
שינויים אפיגנטיים יכולים לשנות את הפנוטיפ מבלי לשנות את רצף הנוקלאוטידים הגנומי של אורגניזם על ידי ויסותתהליכים הקשורים לכרומטין6. ויסות אפיגנטי קנידרי נחקר בעיקר בהקשרים של היסטוריה אבולוציונית והתפתחות 7,8,9,10, הקמת סימביוזה ותחזוקתה 11,12,13, ותגובה לשינויים סביבתיים 14,15. באופן ספציפי, שינויים בדפוסי מתילציה של דנ"א, אשר, ברוב המקרים, כרוכים בתוספת של קבוצת מתיל לבסיס ציטוזין, נצפו בתגובה לתנאים סביבתיים משתנים כגון התחממות13 והחמצת האוקיינוס16. דפוסי מתילציה של דנ"א הוכחו גם כתורשתיים בין-דוריים, תוך הדגשת תפקידה של האפיגנטיקה בהתאקלמות אלמוגים לגורמי עקה סביבתיים17. בהשוואה למתילציה של דנ"א, נערכו מחקרים מעטים יחסית על רגולטורים אפיגנטיים חשובים אחרים, כגון RNA לא מקודד 11,18,19, גורמי שעתוק 9,10, או שינויים פוסט-תרגומיים של היסטון (PTM) בקנידארים20. חקירת חלבונים הקשורים לדנ"א תובענית במיוחד מכיוון שהשיטות הזמינות דורשות גישה לגנום ייחוס של אורגניזם המחקר והן יקרות בגלל גודל הדגימה הגדול והנוגדנים הספציפיים הגבוהים הדרושים3. עם מגוון רחב של קבוצות כימיות היוצרות PTMs בשאריות היסטון ספציפיות, הבנת נופי שינוי הכרומטין אצל cnidarians, במיוחד בהקשר של לחצים סביבתיים מתקרבים, נותרה אתגר גדול.
מטרת עבודה זו היא לקדם את המחקר של היסטון PTMs, וריאנטים של היסטון וחלבונים אחרים הקשורים לכרומטין, על ידי הצגת פרוטוקול אופטימלי של כרומטין-משקעים חיסוניים (ChIP) עבור מודל האלמוגים E. diaphana (פרוטוקול מקורי של Bodega et al.21). ChIP יכול להיות משולב עם PCR כמותי כדי לאפיין אינטראקציות חלבון-DNA ספציפיות לוקוס או ריצוף הדור הבא (NGS) כדי למפות אינטראקציות אלה על פני הגנום כולו. באופן כללי, חלבונים ודנ"א מקושרים זה לזה באופן הפיך, כך שהחלבון בעל העניין (POI) נשאר קשור לאותו מוקד שאליו הוא משויך in vivo. בעוד ששיטת הקרוס-לינקינג הנפוצה הנמצאת בשימוש נרחב במערכת מודל היונקים נשמרת בדרך כלל עד 15 דקות או פחות בטמפרטורת החדר, גישת הקרוס-לינקינג הותאמה כדי לאפשר לפורמלדהיד לחדור דרך הריר המיוצר על ידי E. diaphana בצורה יעילה יותר. לאחר מכן הרקמה מוקפאת-הבזק בחנקן נוזלי, הומוגנית, ועוברת ליזה כדי לחלץ את הגרעינים מהתאים. אובדן החומר בשלבים אלה נמנע על ידי שימוש בחיץ ליזה אחד בלבד ולאחר מכן עובר ישירות לסוניקציה, אשר מפרקת את הכרומטין לשברים באורך ~300 bp. מקטעים אלה מודגרים עם נוגדן ספציפי לנקודת העניין עד לרמת דיוק של PTM. האימונוקומפלקס נוגדן-חלבון-DNA מואץ באמצעות חרוזים מגנטיים הנקשרים לנוגדנים הראשוניים, ובכך בוחרים רק את מקטעי הדנ"א המשויכים לנקודת העניין. לאחר היפוך קישורים צולבים וניקוי המשקע, ניתן להשתמש במקטעי הדנ"א המתקבלים לבניית ספריית qPCR או DNA לריצוף כדי למפות את המקטעים לגנום ייחוס, ובכך לזהות את המוקדים שנקודת העניין משויכת אליהם. פרטים נוספים על שיקולים עבור כל שלב ניתן למצוא ב- Jordán-Pla וב- Visa22.
פרוטוקול
סקירה פרוצדורלית מוצגת באיור 1. נתוני ChIP-Seq זמינים בארכיון NCBI Sequence Read Archive (SRA) תחת קוד BioProject PRJNA931730 (https://www.ncbi.nlm.nih.gov/bioproject/PRJNA931730).
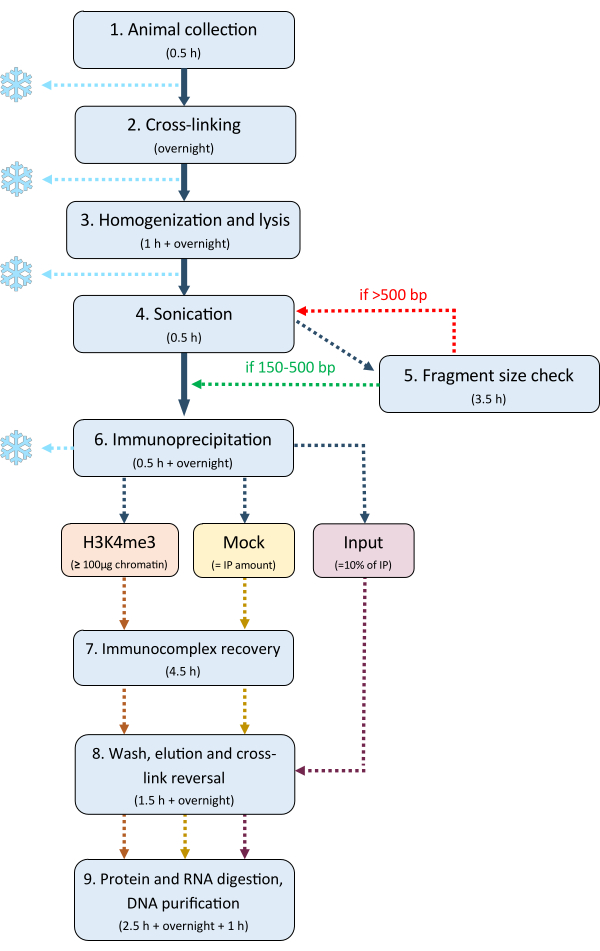
איור 1: זרימת עבודה של פרוטוקול ChIP. מבט כולל על זרימת העבודה של פרוטוקול ChIP, כולל משך הזמן המשוער של כל שלב ונקודות עצירה אופציונליות. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
1. איסוף בעלי חיים
- בעזרת מרית פלסטיק, נתקו בעדינות 20 E. diaphana סימביוטיים (זן CC7) בקוטר דוושה ~5 מ"מ ומעלה מדפנות האקווריום, והכניסו אותם לצינור של 15 מ"ל.
הערה: מומלץ לבצע אופטימיזציה של מספר שושנות הים בהתבסס על גודלן ומספר כתובות ה-IP המיועדות. ניתן להקפיא שושנות ים בחנקן נוזלי (LN2) ולאחסן בטמפרטורה של -80°C למשך חודש אחד לפחות לפני תחילת ה-ChIP. אחרת, מומלץ להמשיך מיד כדי למנוע את שושנות הים להתיישב על הקירות של צינור 15 מ"ל.
2. קרוס-לינקינג
- הכן 10 מ"ל של חיץ הצלבה 0.5% (טבלה 1).
- תנו לשושנות הים לשקוע בתחתית הצינור, או סובבו אותן בצנטריפוגה למשך מספר שניות, עולות ל~3,500 x גרם בטמפרטורת החדר, ולאחר מכן הסירו עודפי מי ים בעזרת משאבת ואקום. שטף אותם ב- DPBS 1x על ידי השעייתם ולאחר מכן הסר את ה- DPBS.
- העבירו את שושנות הים למאגר הצולבות של 0.5% באמצעות פינצטה או מרית פלסטיק כדי להימנע מהעברת המאגר המיותר. דגירה על מסובב ב 12 סל"ד ו 4 ° C במשך 1 שעה.
- בינתיים, הכינו 10 מ"ל של חיץ 1% צולב (טבלה 1).
- כמו בשלב 2.2, הסר את המאגר של 0.5% ומלא מחדש את הצינור במאגר קישור צולב של 1%. יש לדגור על מסובב ב-12 סל"ד וב-4 מעלות צלזיוס למשך הלילה.
הערה: ודא שכל שושנות הים מושעות ולא נצמדות זו לזו על ידי היפוך הצינור בעדינות. - למחרת, הכינו 10 מ"ל של חיץ מרווה ממלאי גליצין של 2 מ' (טבלה 1).
- הסר את מאגר הקישור הצולב של 1% כמו בשלב 2.2, והשהה את שושנות הים במאגר המרווה כדי לעצור את תגובת הקישור הצולב. יש לדגור על מסובב ב-12 סל"ד וב-4 מעלות צלזיוס למשך 20 דקות.
- הסר את מאגר המרווה כמו בשלב 2.2, ושטוף את שושנות הים פעמיים ב- DPBS. אם אתה מטפל במספר דגימות, שמור את שושנות הים מושעות ב- DPBS תוך כדי עבודה על שלבים 3.2-3.4 דגימה אחר דגימה.
הערה: ניתן להשהות את הניסוי על ידי הקפאת הדגימה בהצמדה ואחסונה- בטמפרטורה של -80 מעלות צלזיוס למשך חודש אחד לכל היותר בשלב זה. הסר DPBS עודף על ידי ריקון הצינור על טישו נייר לפני הקפאה ואחסון.
טבלה 1: פתרונות ומאגרים המשמשים בפרוטוקול ChIP. המרכיבים והריכוזים המתאימים שלהם מפורטים עבור כל מאגר המשמש בפרוטוקול. אנא לחץ כאן כדי להוריד טבלה זו.
3. הומוגניזציה וליזיס
- הכינו את חיץ הליזיס (טבלה 1) טרי ביום (2 מ"ל לדגימה), והוסיפו קוקטייל מעכב פרוטאז 100x (PIC, ראו טבלת חומרים) לריכוז סופי של 1x. נקו מכתש חרסינה ופשטו עם אתנול, והתחילו לקרר את כל הכלים עם LN2.
- דקרו את ה-DPBS, ורוקנו את שושנות הים על ממחטת נייר כדי להסיר כמה שיותר נוזלים. יוצקים מעט LN2 לתוך הטיט, ומעבירים את שושנות הים באמצעות פינצטה.
- באמצעות pestle, להתחיל על ידי פירוק בזהירות את הרקמה, ולאחר מכן לטחון עד הדגימה היא אבקה דקה. המשיכו למלא את LN2 לפי הצורך כדי למנוע הפשרה.
- מניחים 2 מ"ל של חיץ ליזיס בצינור 5 מ"ל על קרח. אספו את הדגימה באמצעות מרית, והעבירו אותה למאגר הליזיס, כדי להבטיח שהדגימה תתמוסס בחיץ. תן את הדגימה לנוח על קרח במשך 1 דקות, ולאחר מכן לערבב על ידי היפוך. חזור על שלבים 3.2-3.4 עבור כל הדגימות האחרות, ניקוי יסודי של כל הציוד עם אתנול בין הדגימות.
הערה: צמצם את אובדן הדגימה ככל האפשר בשלב זה. - שטפו מטחנת רקמות Dounce (ראו טבלת חומרים) עם חיץ ליזיס, העבירו את הדגימה, והקפיצו 20-30 פעמים עם מזיק הדוק.
- העבירו את הדגימה בחזרה לצינור שלה, שטפו את מטחנת הרקמות באתנול ומים מזוקקים, וחזרו על שלב 3.5 עבור כל הדגימות.
- דגרו את הדגימות על מסובב ב~14 סל"ד ו -4 מעלות צלזיוס למשך הלילה.
- השתמש בכחול טריפאן כדי לבדוק ליזה מוצלחת תחת המיקרוסקופ (הגדלה של פי 20) על ידי ערבוב עם דגימה של 10 μL ביחס של 1:1. אם הצבע חודר לגרעינים, הליזה מצליחה.
הערה: ניתן להשהות את הניסוי בשלב זה על ידי אחסון הדגימה ב -80 ° C למשך עד חודשיים.
4. סוניקציה
- סובבו בקצרה את הדגימה בצנטריפוגה ב~2,000 x גרם למשך 3-5 שניות בטמפרטורת החדר כדי להסיר נוזל מהפקק ומהקירות.
- מעבירים את הליזט דרך מחט 25 גרם ומזרק 1 מ"ל 10 פעמים כדי לפרק את כל האגרגטים.
- הניחו את הדגימה באמבט קרח כדי לשמור עליה קרירה ככל האפשר במהלך הסוניקציה.
- נקו את מחט הסוניקציה עם אתנול. הניחו את הדגימה בסוניקטור (ראו טבלת חומרים) כאשר המחט נמצאת 1 ס"מ מעל תחתית הצינור ולא נוגעת בדפנות.
- הגדר את מחזור העבודה ל- 50% ואת התפוקה ל- 0. הפעל את הסוניקטור, וודא שלא מיוצר קצף בדגימה (אחרת, עצור והתאם מחדש את מיקום המחט). הגדל באיטיות את עוצמת הפלט ל- 2, ולאחר מכן בצע סוניקציה למשך 2 דקות.
- כבה את הסוניקטור, הגדר את עוצמת הפלט בחזרה ל- 0 ותן לדגימה לנוח ולהתקרר למשך 2 דקות.
- חזור על שלבים 4.5-4.6 לקבלת סך כולל של ארבע ערכות סוניקציה וקירור לכל דגימה. הסר את הדגימה, אחסן אותה על קרח ולאחר מכן חזור על הפעולה עם דוגמאות אחרות. נקו את מחט הסוניקטור עם אתנול בין הדגימות ובסוף.
הערה: ייתכן שיהיה צורך למטב את עוצמת הסוניקציה ואת מספר המחזור כדי להגיע לעוצמת הסוניקציה הנמוכה ביותר תוך הפקת מקטעים בגודל של 150-500 bp.
5. מיצוי DNA ובדיקת גודל מקטע
הערה: לפני המעבר ל- IP, יש לבדוק את גודל השברים. אם השברים גדולים מדי (>500 bp), יש להגדיל את מספר מחזורי הסוניקציה ו/או את עוצמת הסוניקציה; אם הם קטנים מדי (<150 bp), יש להפחית את זמן ו/או עוצמת הסוניקציה.
- שמור את הדגימה על קרח בעת ביצוע בדיקת גודל הקטע על תת-קבוצה של הדגימה. מעבירים תת-קבוצה של 100 μL לתוך צינור טרי של 1.5 מ"ל.
- הוסיפו 8 μL של קוקטייל RNase (ראו טבלת חומרים), ודגרו בטמפרטורה של 42°C למשך 30 דקות תוך כדי ניעור ב-700 סל"ד.
- הוסף 2 μL של proteinase K (ראה טבלת חומרים). ולדגור בטמפרטורה של 55°C למשך שעה אחת תוך כדי רעידות ב-700 סל"ד.
- הפוך להצליב את הדגימה על ידי דגירה שלה ב 95 ° C במשך לפחות 1 שעה תוך רעד ב 700 סל"ד.
- הכינו ג'ל אגרוז 1% עם חיץ TAE 1x ו-0.01% אתידיום ברומיד (ראו טבלת חומרים) או כתם ג'ל חלופי.
- יש לחלץ את הדנ"א מהדגימה באמצעות ערכת טיהור בהתאם להוראות היצרן (ראה טבלת חומרים).
- כדי לבדוק את גודל הפיצול של ה- DNA שחולץ, טען את ג'ל האגרוז עם סולם ודגימה. מערבבים 4 μL של סולם 1 kbp עם 1 μL של צבע העמסה סגול 6x, ומניחים אותו בבאר אחת של ג'ל האגרוז. מערבבים 20 μL של DNA עם 4 μL של צבע העמסה סגול 6x לריכוז סופי של 1x, ופיפטה לתוך באר. חזור על הפעולה עבור כל הדגימות.
- הפעל את הג'ל במתח של 100 וולט למשך כ-30 דקות, ולאחר מכן צלם את הג'ל על-ידי הטענתו על מגש, הנחתו במערכת ההדמיה של הג'ל וביצוע ההוראות של תוכנת המערכת המתאימה (ראה טבלת חומרים). החליטו אם להמשיך הלאה בהתבסס על גדלי הפיצול, שאמורים להיות בין 150 ל-500 bp בממוצע (איור 2).
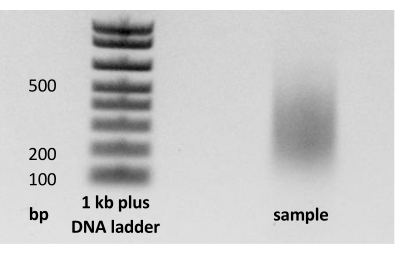
איור 2: בדיקת גודל שבר. לאחר הסוניקציה, תת-קבוצה של הדגימה עוברת דה-קרוסלינקציה, מטוהרת ורצה על ג'ל אגרוז כדי להבטיח שהכרומטין נחתך לגודל שבר בין 150-500 bp. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
6. משקעים חיסוניים (IP)
- באמצעות פיפטה, בדוק את נפח הדגימה העיקרית שנשמרה על קרח במהלך מיצוי ה- DNA. הוסף 10% Triton X-100 לריכוז סופי של 1%.
- סובבו את הדגימה בטמפרטורה של 20,000 x גרם ב-4°C למשך 10 דקות, ולאחר מכן העבירו את הסופרנאטנט לצינור נקי באמצעות פיפטה.
הערה: ניתן להשהות את הניסוי כאן על ידי הקפאת הדגימה ב -80 ° C למשך עד חודשיים. יהיה צורך להתאים ולמטב את הפרטים של שלבי ה- IP הבאים עבור כל ניסוי. ייתכן שיהיה צורך למטב את כמות הנוגדנים לכל IP. - באמצעות חיץ ליזיס ריק, למדוד את ריכוז הכרומטין בהתאם להוראות של מערכת מדידת ריכוז DNA זמינה (ראה טבלת חומרים).
- בהתאם לנפח הדגימה ולמספר כתובות ה-IP המתוכננות, הגדל את הנפח הכולל של הדגימה על-ידי הוספת 10% Triton X-100 ו-100x PIC (ראה טבלת חומרים) לריכוזים סופיים של 1% ו-1x, בהתאמה. מומלץ להשתמש ב-100 מיקרוגרם כרומטין בנפח כולל של 1,000 מיקרוליטר.
- חלק את אמצעי האחסון עבור כל IP לצינור נפרד בעל שמירה נמוכה של 1.5 מ"ל (ראה טבלת חומרים). עבור ChIP-qPCR, מקם את נפח הדגימה המקביל בצינור אחר של 1.5 מ"ל כפקד דמה. קח 10% מנפח כתובות ה- IP כבקרת הקלט, ואחסן אותו ב -20 ° C.
- הוסף 4 מיקרוגרם של נוגדן (כאן, נוגדן H3K4me3, ראה טבלת חומרים) לכל IP בהתאמה. לא להוסיף דבר ללעג. לדגור על תגובות ה-IP והדמה על מסובב הצינור ב-12 סל"ד וב-4 מעלות צלזיוס למשך הלילה.
7. התאוששות של immunocomplexes עם חרוזים מגנטיים
הערה: הימנע תמיד מייבוש החרוזים המגנטיים; שמור אותם מכוסים בנוזלים, או לחדש את התמיסות מהר ככל האפשר. תמיד לעבוד על מדגם אחד אחרי השני.
- הפכו בעדינות את החרוזים המגנטיים (ראו טבלת חומרים) כדי לערבב.
- הכינו 10 מ"ל של תמיסה חוסמת (טבלה 1) טרייה ביום, וערבבו בעדינות.
- חותכים את קצה קצה פיפטה כדי להגדיל את הקוטר, ומעבירים 50 μL של חרוזים מגנטיים לצינורות נפרדים (צינור אחד לכל IP ואחד לדמה).
- הוסף 1 מ"ל של תמיסת חסימה לכל צינור, ודגר אותם על מסובב ב 12 סל"ד ו 4 ° C במשך 30 דקות.
- הניחו את החרוזים בתמיסת החסימה על מדף מגנטי, והמתינו להפרדה. בינתיים, סובבו את תגובות ה-IP ב-2,000 x גרם למשך 3-5 שניות בטמפרטורת החדר כדי להסיר שאריות מהקירות.
- בעזרת פיפטה, הסירו והשליכו את תמיסת החסימה סופר-נטנט, ולאחר מכן שטפו את החרוזים מהקיר עם אחת הדגימות או הדמה. החזירו את התערובת לצינור המתאים בעל השמירה הנמוכה, ולאחר מכן עברו לדגימה הבאה.
- לדגור את כל הצינורות על מסובב ב 12 סל"ד ו 4 ° C במשך 3 שעות.
8. שטיפה, הדבקה והיפוך קישורים צולבים
- הכינו את מאגרי השטיפה ואת חיץ המלח TE (טבלה 1) במהלך הדגירה של ההתאוששות האימונוקומפלקסית.
- לאחר הדגירה, הניחו את כתובות ה-IP והדמה על המדף המגנטי, והמתינו כ-10-20 שניות עד שהמגנטים ייפרדו.
- השליכו את הסופרנטנט, והוסיפו 1 מ"ל של חיץ כביסה עם מלח נמוך. חזור על הפעולה עם כל התגובות, ולאחר מכן הסר את הצינורות מהמדף המגנטי וערבב עד שהחרוזים מושהים.
- יש לדגור על מסובב ב-12 סל"ד וב-4 מעלות צלזיוס למשך 5 דקות.
- הניחו את הצינורות על המדף המגנטי, הסירו את חיץ השטיפה עם מלח נמוך, ואז הוסיפו 1 מ"ל של חיץ כביסה עם מלח גבוה, ודגרו כמו בשלב 8.4.
- חזור על שלבים 8.3-8.5 פעם נוספת עבור סך של ארבע שטיפות באמצעות מלח נמוך וגבוה לסירוגין.
הערה: חיץ השטיפה עם מלח גבוה הוא קשה מאוד ויש להשתמש בו רק למשך 5 דקות בדיוק בכל שלב כביסה. - הסר והשליך את supernatant באמצעות פיפטה, ולשטוף עם 1 מ"ל של חיץ מלח TE; חזור על הפעולה פעם נוספת. לאחר השטיפה השנייה, שטפו את כל החרוזים ממכסה הצינור.
- הכינו את חיץ האלוציה (טבלה 1) במהלך הכביסה. לאחר השלכת שטיפת חיץ המלח השנייה של TE, הוסף 210 μL של חיץ אלוציה לכל תגובה.
- להשהות את החרוזים המגנטיים, ולשקוע ב 65 ° C, רועד ב 700 סל"ד במשך 15 דקות.
- הניחו את התגובות על המדף המגנטי, אספו את הפולט והניחו אותו בצינור טרי של 1.5 מ"ל.
- חזור על תהליך האלוציה עם עוד 210 μL של מאגר אלוציה, והוסף את ה- eluate לאצווה הראשונה לקבלת נפח סופי של 420 μL של elute לכל IP ו- mock.
- מוציאים את הקלט מהמקפיא ומוסיפים מאגר אלוציה לנפח כולל של 420 μL.
- הפוך cross-link כל eluates ואת הקלט על ידי דגירה אותם ב 65 ° C ו 700 סל"ד לילה.
9. עיכול חלבונים ורנ"א וטיהור DNA
- דלל את ריכוז SDS (ראה טבלת חומרים) ל -0.5% על ידי הוספת 420 μL של חיץ מלח TE לפליטה ולקלט.
- לעיכול RNA, יש להוסיף 10 μL של קוקטייל RNase (ראו טבלת חומרים), ולדגור ב-42°C ב-700 סל"ד למשך 30 דקות.
- לעיכול חלבונים, יש להוסיף 8 μL של פרוטאינאז K (ראו טבלת חומרים) לכולם, ולדגור ב-55°C ב-700 סל"ד למשך שעה אחת.
- לטיהור DNA, עקוב אחר "Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP"23 עם כמה התאמות:
- הכינו את השפופרות עם ג'ל Phase Lock (ראו טבלת חומרים) על ידי סיבוב הג'ל לתחתית הצינור במהירות של 20,000 x גרם למשך דקה אחת בטמפרטורת החדר.
- מתחת למכסה אדים, הוסף דגימה אחת ואת אותו נפח של פנול:כלורופורם:אלכוהול איזואמיל (25:24:1) לכל צינור. נערו את הצינורות במרץ, וערברו אותם לזמן קצר עד שהם יוצרים שכבה לבנה מקציפה.
אזהרה: התערובת רעילה, מאכל ומהווה סכנה בריאותית. - סחרור במשך 10 דקות ב-4°C וב-20,000 x גרם. בדקו שהפאזה המימית ברורה.
- מעבירים את הפאזה המימית לצינור טרי באמצעות פיפטה. שתי מבחנות טריות לכל דגימה נדרשות בהתאם לנפח הדגימה הסביר. במקרה זה, להעביר מחצית הדגימה מן הראשון לתוך צינור שני.
- הוסף 1/10 מהנפח בנתרן אצטט 3 M (NaAc, למשל, 40 μL עבור דגימה של 400 μL) ו- 10 μL של 5 מ"ג / מ"ל אקרילאמיד ליניארי לכל דגימה, והפוך כדי לערבב.
- הוסף נפח דגימה גדול פי 2 באתנול 100% (למשל, 800 μL עבור דגימה של 400 μL), ונער במרץ. אין לערבל, שכן הדבר עלול לפגוע בדנ"א.
- יש לדגור בטמפרטורה של -20°C למשך הלילה או בטמפרטורה של -80°C למשך 30 דקות.
- קרר את הצנטריפוגה ל -4 מעלות צלזיוס, ולאחר מכן סובב את הדגימות במשך 30 דקות ב 15,000 x גרם כדי לגלול את הדנ"א.
- בזהירות decant ולאחר מכן לשטוף את הכדורים עם 1 מ"ל של 70% EtOH. סחרור במהירות מרבית במשך 5 דקות ב-4°C.
- בזהירות decant, ולאחר מכן לסובב שוב במשך כמה שניות. השתמש פיפטה כדי להסיר את כל אתנול. אם נשאר קצת זמן, זה עשוי לעזור להסתובב שוב.
- יש להשהות מחדש את הכדוריות ב-30 מיקרוליטר מים נטולי נוקלאז (ראו טבלת חומרים).
הערה: אם יש מספר צינורות בכל דגימה, השהה מחדש גלולה אחת ב- 30 μL, העבר לצינור הבא והשהה מחדש את הגלולה הבאה באותו 30 μL.
- מדוד את ריכוז ה- DNA, ולאחר מכן אחסן את הדגימה ב -20 ° C.
תוצאות
בעקבות הפרוטוקול הנ"ל, DNA הקשור לטרימתילציה של היסטון 3 ליזין 4 (H3K4me3) עבר זירוז חיסוני. הנוגדן בדרגת ChIP-seq שימש בעבר בשושנת הים Nematostella vectensis7 ואומת כאן על-ידי צביעה אימונופלואורסצנטית של מקטעי רקמת E. diaphana (איור 3). בעוד שתפוקת הדנ"א תלויה בכמות חומר הקלט, היא הייתה באופן קבוע סביב 100 ננוגרם/מיקרוליטר. מקטעי הדנ"א שהתקבלו נותחו על ידי ריצוף ו-qPCR (רשימת פריימר בקובץ משלים 1).
עומק רצף של 40 מיליון קריאות הניב ~17.6 מיליון קריאות ממופות באופן ייחודי. לאחר בדיקות איכות, הקריאות הגולמיות נחתכו ומופו לגנום E. diaphana באמצעות Bowtie24 (ראו טבלת חומרים). הניתוח מבוסס המודל של נתוני ChIP-Seq עם MACS (ראה טבלת חומרים) זיהה בסך הכל 19,107 פסגות25. כצפוי עבור H3K4me3, רוב הפסגות היו ממוקמות ליד אתר התחלת השעתוק (TSS), ותדירות ספירת השיא ירדה בחדות משני צידי ה-TSS, אך במיוחד לכיוון גוף הגן (איור 4).
שלושה גנים עם פסגות גבוהות סביב ה-TSS שלהם זוהו מנתוני הריצוף, ופריימרים של qPCR תוכננו להתמקד בכמה מוקדים של פסגות גבוהות בתוך גנים אלה. נתוני qPCR נורמלו באמצעות שיטת אחוז הקלט (איור 5). נצפתה העשרה גבוהה של H3K4me3 ביחס לבקרות הקלט והמדומה. אחוז הקלט נע בין 2.7% ל-10.7%, כאשר נצפו הבדלים בהעשרה בין גנים ובין מוקדים שונים בתוך אותו גן.
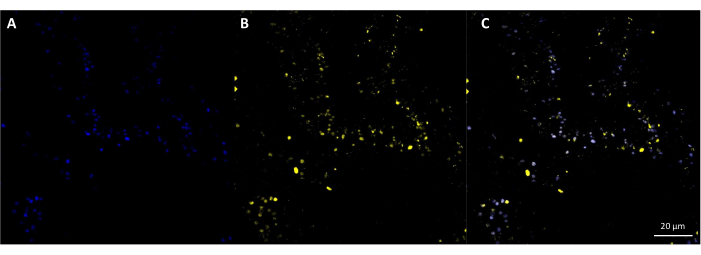
איור 3: צביעה אימונופלואורסצנטית של H3K4me3. קטע רקמת E. diaphana הוכתם ב-(A) כתם כחול של חומצת גרעין Hoechst ו-(B) נוגדן משני צהוב עם תווית פלואורופור כנגד הנוגדן הראשוני נגד H3K4me3. (C) חפיפה של A ו-B המראה לוקליזציה משותפת בגרעין. סרגל קנה מידה = 20 מיקרומטר. לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
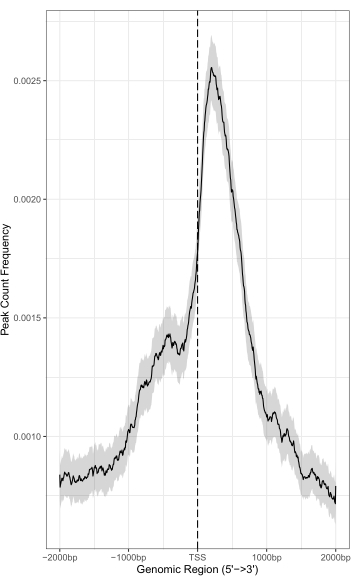
איור 4: תדירות גבוהה של ספירת שיא סביב אתר התחלת התמלול. התפלגות תדירות ספירת השיא של שינוי H3K4me3 המשתרעת במעלה הזרם (−) ובמורד הזרם (+) 2,000bp סביב אתר התחלת התמלול (TSS). אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
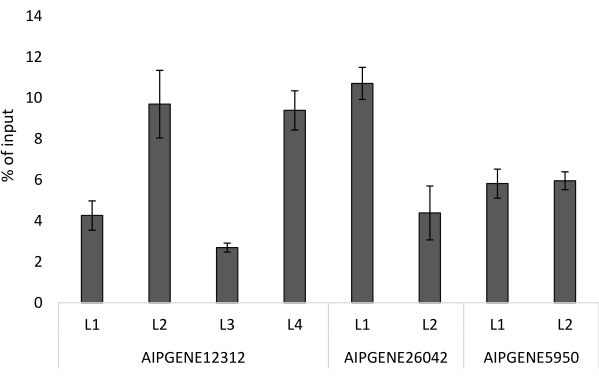
איור 5: H3K4me3 ChIP-qPCR בדיאפאנה Exaiptasia. התוצאות מיוצגות כאחוז (%) של קלט. לוקים ליד אתר התחלת השעתוק של הגנים המתאימים (AIPGENE12312, AIPGENE26042 ו-AIPGENE5950) נבחרו עבור ChIP-qPCR. קווי שגיאה מציינים את סטיית התקן בין העותקים המשוכפלים, n = 3. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
קובץ משלים 1: רשימת פריימרים המשמשים ל- qPCR. אנא לחץ כאן כדי להוריד קובץ זה.
דיון
בעקבות הפרוטוקול לעיל, ה- DNA שהתקבל שימש בהצלחה עבור ChIP-qPCR ו- ChIP-Seq. אותו פרופיל שיא כללי עבור H3K4me3 שדווח בעבר מאורגניזמים אחרים 26,27,28 התקבל כאן, עם הפסגה הגבוהה ביותר סביב TSS והעשרה גבוהה באתרים הצפויים ב- ChIP-qPCR. ייתכן שהמספר הגבוה יחסית של קריאות ממופות כפולות בנתוני ChIP-Seq נגרם על ידי כפילויות PCR. ניתן להגדיל את כמות הקריאות הממופות באופן ייחודי על ידי שינויים בפרוטוקול הכנת ספריית ה- DNA כדי להפחית כפילויות PCR. ישנן מספר שיטות נורמליזציה עבור נתוני ChIP-qPCR, כאשר אחוז שיטת הקלט המוצגת כאן נפוצה יותר. שיטה זו מנרמלת את ה- IP ואת דגימות דמה ישירות לקלט, עם החיסרון כי הקלט מעובד באופן שונה מן ה- IP דגימות דמה במהלך ChIP, אשר עשוי להציג שגיאות. שיטת העשרת הקיפול החלופית מנרמלת את האות של ה- IP בהתבסס על האות של הדמה באמצעות אותן ערכות פריימר, ובכך נותנת יחס אות-על-רקע. עם זאת, עוצמת האות של מדגם דמה יכול להשתנות מאוד, אשר, בתורו, יש השפעות גדולות על הנתונים. דיון מפורט על ChIP-qPCR ונורמליזציה של נתונים ניתן למצוא ב Haring et al.29.
התאמה משמעותית בשיטה שהוצגה לעיל בהשוואה לפרוטוקולי ChIP נפוצים היא זמן הקישור הצולב, מסביבות 15 דקות עבור חלבוני היסטון לדגירת לילה. המטרה העיקרית של התאמה זו היא להקל על חדירת הפורמלדהיד המקובע דרך שכבת הריר לתוך הרקמה העמוקה יותר של E. diaphana כדי לשמר את אינטראקציות החלבון-DNA בתוך הגרעין. אופטימיזציה של שלב זה היא קריטית כדי להבטיח מספיק cross-linking כדי לשמר את אינטראקציות חלבון-DNA ללא cross-linking עד כדי כך שחיתוך הכרומטין על ידי סוניקציה הופך ללא יעיל. הוספת דטרגנטים כגון SDS יכולה להגדיל את יעילות הסוניקציה גם כן29. בנוסף, דגירה ארוכה עם פורמלדהיד נמצאה כמקלה על שלב ההומוגניזציה והביאה לדגימה טחונה עדינה ואחידה יותר בהשוואה לשושנות ים טריות או קפואות שעברו הומוגניות לפני שלב הקישור הצולב. הטווחים המומלצים של אורכי המקטעים נעים בין 100 bp ל-1,000 bp 29,30 ועשויים להיות תלויים בחלבון המטרה. זה קריטי שכל משתמש ימטב את תנאי הסוניקציה כדי להגיע לאורך המקטע הרצוי עם עוצמת סוניקציה קטנה ככל האפשר, מכיוון שסוניקציה מוגזמת עלולה לפרק את החלבונים, ובכך להשפיע על IP31. מגבלה נוספת של ChIP היא כמות החומר הנדרשת, אשר משפיעה במיוחד על אורגניזמים קטנים יחסית כגון שושנות ים; בעיה זו טופלה על ידי הפחתת אובדן הדגימה בין השלבים. לאחר הומוגניזציה של הדגימה, היא עברה ליזה מיידית, ובכך הושמטה מספר שלבי הכנת גרעינים נפוצים. מאגר הדגימות שהתקבל מ-20 שושנות ים הכיל בדרך כלל מספיק כרומטין לשלוש כתובות IP וגם בקרות דמה וקלט. כמות החומר ההתחלתי (כלומר, מספר שושנות הים) עשויה להיות מופחתת עוד יותר בעתיד, במיוחד בעת ביצוע ChIP עם חלבון מטרה אחד בלבד. בהתאם לשיטה המיועדת במורד הזרם, יש להתאים את הפקדים; עבור ChIP-qPCR, יש לשקול לכלול פקדים נוספים29, ואילו עבור ChIP-seq, ניתן להשמיט את הדמה לטובת פקד קלט.
בעוד אימות נוגדנים הוא מחוץ לטווח של פרוטוקול זה היה, לכן, רק נגע בקצרה כאן, זה צעד קריטי לפני ביצוע ChIP. במיוחד כאשר משתמשים בנוגדנים מסחריים על מינים חסרי חוליות, הזמינות של נוגדנים ספציפיים למטרות הרצויות יכולה להיות מגבלה. בשלב הראשון, רצף הזנב H3 N-terminal של E. diaphana ואורגניזמים מודל אחרים, כולל דגי זברה ועכברים, הושווה ונמצא שמור מאוד12. הספציפיות של הנוגדנים נבדקה לאחר מכן באמצעות אימונופלואורסנציה, אשר מיקמה את האותות של חומצת הגרעין והנוגדן. פרופיל השיא של H3K4me3 סביב TSS המתקבל מנתוני הרצף נותן ביטחון נוסף לגבי הספציפיות של הנוגדן.
שיקול נוסף לגבי ספציפיות נוגדנים הוא האפשרות של כל אינטראקציה עם dinoflagellates סימביוטי כי E. diaphana, כמו גם אנתוזואנים רבים אחרים, לארח בתאים שלהם. ניתוחי שעתוק בדינופלגלטים מהסוגים Lingulodinium32 ו-Symbiodinium33 מצאו גנים מקודדי היסטון, כולל ליבת היסטון H3 וכמה גרסאות H3 ברמות ביטוי נמוכות, ומידת השימור הפונקציונלי של קוד ההיסטון אינה ברורה34. מרינוב ולינץ'34 השוו את שימור הרצף של זנבות N-טרמינליים מסוג H3 בתוך ובין מיני דינופלגלטים, ומיני Symbiodiniaceae הראו סטייה גבוהה סביב ליזין 4 ברצף הזנב, במיוחד כאשר לוקחים בחשבון את ההלימה של חומצות אמינו סמוכות לליזין 4 כגורם. אזור זה הוכח גם כשונה ממיני מודל אחרים כגון Arabidopsis thaliana, Drosophila melanogaster ו - Saccharomyces cerevisiae, התואמים את הרצף של E. diaphana12. לכן, הסיכון לאינטראקציה לא מכוונת של הנוגדן נגד H3K4me3 עם dinoflagellate H3 הוא נמוך. בנוסף, הרצפים מיושרים רק לגנום E. diaphana , והפריימרים של qPCR צריכים להיות ספציפיים לרצפי E. diaphana , ולספק שכבה נוספת של סינון של רצפים לא מכוונים.
פרוטוקול ChIP המוצג מניב מספיק DNA עבור qPCR כמו גם ריצוף הדור הבא, ובעוד אופטימיזציה אישית על ידי כל משתמש ככל הנראה תידרש, הוא מספק נקודת מוצא לחקירה מוגברת של אינטראקציות חלבון-DNA ב cnidarians benthic, אולי בהקשר של סימביוזה ושינויים סביבתיים.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1 kb Plus DNA סולם | Invitrogen | 10787018 | |
| 100% אתנול | |||
| 15 מ"ל צינורות | |||
| 16% תמיסת פורמלדהיד (w/v), ללא מתנול | תרמו מדעי | 28906 | |
| 5 מ"ל צינור | |||
| 5PRIME צינורות נעילת פאזה | Quantabio | 2302820 | נעילת פאזה ג'ל - מחט AGANI קלה |
| 25 גרם | Terumo | AN*2516R1 | |
| Agarose | |||
| Bovine Serum Albumin | Sigma-Aldrich | A7030 | |
| Bowtie | קוד פתוח, זמין מ-https://bowtie-bio.sourceforge.net/index.shtml | ||
| Branson sonifier 250 | Branson | Sonicator | |
| צנטריפוגה | Eppendorf | 5430 R | עם רוטורים לצינורות 15 מ"ל ו-1.5 מ"ל |
| נוגדן בדרגת ChIP (כאן נוגדן H3K4me3 פוליקלונלי) | דיאגנוד | C15410003 | |
| מעכב פרוטאז שלם ללא EDTA קוקטייל | רוש | 11873580001 | 2 טבליות/מ"ל מים למלאי 100x |
| כיסוי זכוכית | vwr | 48393 194 | |
| מרית חד פעמית | vwr | 80081-188 | |
| ערכת טיהור DNA (כאן ערכת טיהור PCR מהירה QIAGEN QIA) | QIAGEN | 28104 | |
| מטחנת רקמות Dounce | עלי הדוק | ||
| Phosphate Buffered Saline (DPBS) 1x | gibco | 14190-094 | |
| Dynabeads חלבון G | Thermo Fisher Scientific | 10004D | |
| EDTA | Sigma-Aldrich | 3609 | |
| EGTA | Sigma-Aldrich | 324626 | |
| אלקטרופורזה | |||
| Ethidium bromide | |||
| FASTQC v0.11.9 | תוכנה | ||
| Gel Doc EZ מערכת תיעוד | Bio-Rad | 1708270 | מערכת הדמיית ג'ל |
| Glycine | Sigma-Aldrich | 50046 | |
| מזרק Injekt-F Tuberculin 1 מ"ל | B. Braun | 9166017V | |
| אקרילאמיד ליניארי (5 מ"ג/מ"ל) | Invitrogen | AM9520 | |
| צינור | |||
| מתלה | לצינורות 1.5 מ"ל | ||
| מיקרוסקופ | |||
| שקופית | |||
| מיקרוסקופניתוח מבוסס מודלים של ChIP-Seq (MACS) | קוד פתוח | ||
| מרגמה ועלי, פורצלן | |||
| NanoDrop 2000c ספקטרופוטומטר | Thermo scientific | ND-2000C | |
| N-lauroylsarcosine | Sigma-Aldrich | 61739 | |
| ללא גרעין | |||
| פסטר פיפטה | |||
| פנול: כלורופורם: תערובת אלכוהול איזואמיל (25: 24: 1) | סיגמא-אולדריץ' | 77617 | |
| פרוטאינאז K (20 מ"ג/מ"ל) | אמביון | AM2546 | |
| צבע טעינה סגול 6x | ניו אינגלנד BioLabs | B7024S | |
| Qubit 2.0 פלואורומטר | Invitrogen | ||
| RNase תערובת אנזימי קוקטייל | Invitrogen | AM2286 | RNase A = 500 U/mL, RNase T1 = 20000 U/mL |
| נתרן אצטט | Sigma-Aldrich | S2889 | |
| נתרן כלורי | סיגמא-אולדריץ | S9888 | |
| נתרן דאוקסיכולט | סיגמא-אולדריץ' | 30970 | |
| SYBR כתם ג'ל בטוח DNA | Invitrogen | S33102 | |
| TAE מאגר | |||
| תרמומיקסר | אפנדורף | 5384000012 | |
| בסיס | טריס תמיסת סיגמא-אולדריץ' | 10708976001 | |
| טריטון X-100 | סיגמא-אולדריץ' | 93443 | |
| טריפן כתם כחול (0.4%) | ג'יבקו | 15250-061 | סכנה: עלול לגרום לסרטן. חשוד בפגיעה בפוריות או בילד שטרם נולד |
| מסובב צינור SB3 | Stuart | ||
| UltraPure SDS Solution, משאבת | |||
מקורות
- Pörtner, H. -O. 2022: Summary for Policymakers. Climate Change 2022: Impacts, Adaptation, and Vulnerability. Contribution of Working Group II to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. , Cambridge University Press. Cambridge, UK. (2022).
- Cziesielski, M. J., Schmidt-Roach, S., Aranda, M. The past, present, and future of coral heat stress studies. Ecology and Evolution. 9 (17), 10055-10066 (2019).
- Eirin-Lopez, J., Putnam, H. Marine environmental epigenetics. Annual Review of Marine Science. 11, 335-368 (2021).
- Rädecker, N. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9 (214), (2018).
- Baumgarten, S. The genome of Aiptasia, a sea anemone model for coral symbiosis. PNAS. 112 (38), 11893-11898 (2015).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Schwaiger, M. Evolutionary conservation of the eumetazoan gene regulatory landscape. Genome Research. 24 (4), 639-650 (2014).
- Zhang, X., Jacobs, D. A broad survey of gene body and repeat methylation in cnidaria reveals a complex evolutionary history. Genome Biology and Evolution. 14 (2), evab284(2022).
- Schwaiger, M. An ancestral Wnt-Brachyury feedback loop in axial patterning and recruitment of mesoderm-determining target genes. Nature Ecology & Evolution. 6 (12), 1921-1939 (2022).
- Ozment, E., et al. Cnidarian hair cell development illuminates an ancient role for the class IV POU transcription factor in defining mechanoreceptor identity. Elife. 10, e74336(2021).
- Baumgarten, S., et al. Evidence for miRNA-mediated modulation of the host transcriptome in cnidarian-dinoflagellate symbiosis. Molecular Ecology. 27 (2), 403-418 (2018).
- Li, Y. DNA methylation regulates transcriptional homeostasis of algal endosymbiosis in the coral model Aiptasia. Science Advances. 4 (8), eaat2142(2018).
- Rodriguez-Casariego, J. A., Cunning, R., Baker, A. C., Eirin-Lopez, J. M. Symbiont shuffling induces differential DNA methylation responses to thermal stress in the coral Montastraea cavernosa. Molecular Ecology. 31 (2), 588-602 (2021).
- Putnam, H. M., Davidson, J. M., Gates, R. D. Ocean acidification influences host DNA methylation and phenotypic plasticity in environmentally susceptible corals. Evolutionary Applications. 9 (9), 1165-1178 (2016).
- Weizman, E., Levy, O. The role of chromatin dynamics under global warming response in the symbiotic coral model Aiptasia. Communications Biology. 2, 282(2019).
- Liew, Y. J. Epigenome-associated phenotypic acclimatization to ocean acidification in a reef-building coral. Science Advances. 4 (6), eaar8028(2018).
- Liew, Y. J. Intergenerational epigenetic inheritance in reef-building corals. Nature Climate Change. 10 (3), 254-259 (2020).
- Liew, Y. J., et al. Identification of microRNAs in the coral Stylophora pistillata. PLoS One. 9 (3), e91101(2014).
- Huang, C., et al. Identification of long non-coding RNAs in two anthozoan species and their possible implications for coral bleaching. Scientific Reports. 7, 5333(2017).
- Rodriguez-Casariego, J. A., et al. Coral epigenetic responses to nutrient stress: Histone H2A.X phosphorylation dynamics and DNA methylation in the staghorn coral Acropora cervicornis. Ecology and Evolution. 8 (23), 12193-12207 (2018).
- Bodega, B., et al. A cytosolic Ezh1 isoform modulates a PRC2-Ezh1 epigenetic adaptive response in postmitotic cells. Nature Structural & Molecular Biology. 24 (5), 444-452 (2017).
- Jordán-Pla, A., Visa, N. Considerations on experimental design and data analysis of chromatin immunoprecipitation experiments. Chromatin Immunoprecipitation., edited by Visa, N., Jordán-Pla, A. Visa, N., Jordán-Pla, A. , Humana Press. Totowa, NJ. 9-28 (2017).
- ENCODE. Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP. , Stanford University. Available from: https://www.encodeproject.org/documents/ (2023).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biology. 10, R25(2009).
- Feng, J., Liu, T., Qin, B., Zhang, Y., Liu, X. S. Identifying ChIP-seq enrichment using MACS. Nature Protocols. 7, 1728-1740 (2012).
- Howe, F. S., Fischl, H., Murray, S. C., Mellor, J. Is H3K4me3 instructive for transcription activation. BioEssays. 39 (1), e201600095(2017).
- Zhang, Z., Shi, L., Dawany, N., Kelsen, J., Petri, M. A., Sullivan, K. E. H3K4 tri-methylation breadth at transcription start sites impacts the transcriptome of systemic lupus erythematosus. Clinical Epigenetics. 8, 14(2016).
- Li, X. High-resolution mapping of epigenetic modifications of the rice genome uncovers interplay between DNA methylation, histone methylation, and gene expression. The Plant Cell. 20, 2-276 (2008).
- Haring, M. Chromatin immunoprecipitation: optimization, quantitative analysis and data normalization. Plant Methods. 3, 11(2014).
- Landt, S. G. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Research. 22 (9), 1813-1831 (2012).
- Raha, D., Hong, M., Snyder, M. ChIP-Seq: A method for global identification of regulatory elements in the genome. Current Protocols in Molecular Biology. Chapter 21, Unit 21.19.1-Unit 21.19.14 (2010).
- Roy, S., Morse, D. A full suite of histone and histone modifying genes are transcribed in the dinoflagellate Lingulodinium. PLoS One. 7 (4), e34340(2012).
- Bayer, T., et al. Symbiodinium transcriptomes: Genome insights into the dinoflagellate symbionts of reef-building corals. PLoS One. 7 (4), e35269(2012).
- Marinov, G. K., Lynch, M. Diversity and divergence of dinoflagellate histone proteins. G3 Genes, Genomes, Genetics. 6 (2), 397-422 (2016).
הדפסות חוזרות והרשאות
