השיטה שפותחה של תיוג 13C6-Glucose בשילוב עם כרומטוגרפיה נוזלית ברזולוציית מסה ברזולוציה גבוהה היא רב-תכליתית ומניחה את הבסיס למחקרים עתידיים על האיברים והמסלולים העיקריים המעורבים בסינתזה של מטבוליטים שניוניים בצמחי מרפא, כמו גם ניצול מקיף של מטבוליטים שניוניים אלה.
מאמר שיטה
13C6-תיוג גלוקוז הקשור LC-MS: זיהוי של איברים ראשוניים צמחיים בסינתזת מטבוליטים משנית
במאמר זה
סיכום
תקציר
מאמר זה מציג שיטה חדשנית ויעילה לאישור איברים ראשוניים המעורבים בסינתזת מטבוליטים שניונית. כמטבוליט המשני החשוב ביותר בפריזפוליפילה var. yunnanensis (Franch.) יד. -Mzt. (PPY), פריז saponin (PS) יש מגוון רחב של פעילויות פרמקולוגיות PPY הוא ביקוש גובר. מחקר זה ביסס עלים, קני שורש וצרור גזע-כלי דם 13C6-גלוקוז הזנה ולא הזנה ארבעה טיפולים כדי לאשר במדויק את האיברים העיקריים המעורבים בסינתזת פריז ספונינים VII (PS VII). על ידי שילוב ספקטרומטריית כרומטוגרפיה-מסה נוזלית (LC-MS), חושבו במהירות ובמדויק היחסים של 13C/12C של עלה, קנה שורש, גזע ושורש בטיפולים שונים, ונמצאו ארבעה סוגים של יחסי שיא יונים איזוטופיים PS (M−): (M+1) −/M−, (M+2) −/M−, (M+3) −/M− ו-(M+4) −/M−. התוצאות הראו כי היחס של 13C/12C בקני השורש של צרור גזע-כלי דם וקני שורש היה גבוה משמעותית מזה שבטיפול ללא האכלה. בהשוואה לטיפול ללא הזנה, היחס בין מולקולות PS VII (M+2) −/M− בעלים גדל משמעותית תחת טיפולי הזנה של עלים וגבעול-כלי דם. במקביל, בהשוואה לטיפול ללא הזנה, היחס בין מולקולות PS VII (M+2) - / M - בעלים תחת טיפול קנה שורש לא הראה הבדל משמעותי. יתר על כן, היחס בין מולקולות PS VII (M+2) - / M - בגזע, בשורש וקנה השורש לא הראה הבדלים בין ארבעת הטיפולים. בהשוואה לטיפול ללא האכלה, היחס בין מולקולת Paris saponin II (PS II) (M+2) −/M− בעלים תחת טיפול הזנת עלים לא הראה הבדל משמעותי, והיחס (M+3) −/M− של מולקולות PS II בעלים תחת טיפול הזנת עלים היה נמוך יותר. הנתונים אישרו כי האיבר העיקרי לסינתזה של PS VII הוא העלים. הוא מניח את הבסיס לזיהוי עתידי של האיברים והמסלולים העיקריים המעורבים בסינתזה של מטבוליטים משניים בצמחי מרפא.
מבוא
המסלולים הביוסינתטיים של מטבוליטים שניוניים בצמחים הם מורכבים ומגוונים, וכוללים איברי צבירה ספציפיים ומגוונים מאוד1. כיום, אתרי הסינתזה הספציפיים והאיברים האחראים למטבוליטים שניוניים בצמחי מרפא רבים אינם מוגדרים היטב. עמימות זו מציבה מכשול משמעותי לקידום אסטרטגי וליישום של שיטות גידול שנועדו לייעל הן את התשואה והן את האיכות של חומרי מרפא.
ביולוגיה מולקולרית, ביוכימיה וטכניקות תיוג איזוטופים נמצאות בשימוש נרחב כדי לפענח את מסלולי הסינתזה והאתרים של מטבוליטים שניוניים בצמחי מרפא 2,3,4,5, וכל אחת מהמתודולוגיות הללו מציגה חוזקות ומגבלות ייחודיות, כגון הבדלים ביעילות ובדיוק. גישות ביולוגיה מולקולרית, למשל, מציעות דיוק גבוה באיתור האתרים בתוך מסלולים ביוסינתטיים, אך הן גוזלות זמן רב. התועלת שלהם מוגבלת עוד יותר עבור מינים שאין להם רצפים גנומיים זמינים לציבור, מה שהופך את הטכניקות האלה לפחות מעשיות במקרים כאלה6. לעומת זאת, טכניקות תיוג איזוטופים, המשתמשות ביחסים איזוטופיים כמו 3C/12C, 2H/1H ו-18O/16O, מספקות אמצעי מהיר ונגיש לחקור את מנגנוני הסינתזה, ההובלה והאחסון של מטבוליטים שניוניים 7,8. הם יכולים לחשוף את הפיזור המרחבי של תרכובות אורגניות ואיזוטופים יציבים בעלים, ובכך לאפשר שחזור של תנאי הסביבה שחווים העלים לאורך מחזור חייהם9. יתר על כן, היישום של תוויות איזוטופיות חיצוניות, כגון 13C6-גלוקוז 10 ו 13C 6-פנילאלנין 11, מאפשר יצירת מטבוליטים משניים המסומנים בפחמן, ומשפר את הבנתנו את ייצורם ותפקודם.
טכניקות מסורתיות לסימון איזוטופים של פחמן נתקלות באתגרים באיתור האיברים הספציפיים האחראים לסינתזה של מטבוליטים שניוניים בשל האופי הספציפי מאוד למין של המסלולים הביוסינתטיים ומנגנוני ההובלה שלהם. ספקטרומטריית כרומטוגרפיה-מסה נוזלית (LC-MS) עלתה לגדולה ככלי אנליטי מרכזי בזירה זו, המציע שיטה איתנה למעקב אחר איזוטופים אקסוגניים בסינתזה כימית של תרופות וחקירת תהליכים in vivo כגון ספיגה, חלוקה, מטבוליזם והפרשה12. הרגישות, הישירות והאמינות המעולות של LC-MS הופכות אותו לבחירה אידיאלית לניטור הייצור של מטבוליטים משניים בצמחים13. בתקופה האחרונה, LC-MS הפך מועדף יותר ויותר עבור היישום שלה בטכניקות תיוג איזוטופים חיצוניים, המאפשר הערכה של יעילות התיוג על פני דגימות שונות. מתודולוגיה זו מספקת תובנות קריטיות לגבי האיברים הראשוניים העוסקים בסינתזה של מטבוליטים שניוניים בצמחי מרפא, ומשמשת כהשלמה שלא תסולא בפז לשיטות ביולוגיות לזיהוי איברי הסינתזה של תרכובות אלה14,15. כתוצאה מכך, גישה זו לא רק מאפשרת השוואה של יעילות התיוג בין דגימות שונות, אלא גם שופכת אור על איברי המפתח המעורבים ביצירת מטבוליטים שניוניים של צמחים, ובכך משפרת את הבנתנו את הביוסינתזה שלהם.
הצגנו שיטה חדשנית המשלבת סימון איזוטופים של פחמן עם זיהוי LC-MS כדי לזהות את האיברים העיקריים האחראים לסינתזה של מטבוליטים משניים בצמחי מרפא. פריז saponin (PS) יש מגוון רחב של פעילויות פרמקולוגיות כגון אנטי סרטן, אימונומודולציה, ואנטי דלקת16, ו PPY הוא ביקוש גובר17. לכן, השתמשנו בשתילי PPY כנושאי מחקר, ופענחנו שהעלים הם האיבר העיקרי לסנתז את ה-Paris saponin VII (PS VII) (איור 1B) באמצעות תיוג 13C 6-Glucose הקשור לשיטת LC-MS. הגישה שלנו כללה ארבעה טיפולים שונים הכוללים הזנה של 13C6-Glucose לעלים, קני שורש וצרורות גזע-כלי דם, כמו גם בקרת אי-הזנה. הבחירה של 13C6-גלוקוז היא אסטרטגית, כפי שהוא מטבוליזם במהירות לתוך קואנזים אצטיל A באמצעות נשימה, אשר לאחר מכן מקל על סינתזת PS. תוך שימוש בשפע הטבעי של 13C, השתמשנו במערכת ספקטרומטר מסה של יחס איזוטופים יציב לכרומטוגרפיה של גז (GC-IRMS) כדי להעריך את יחסי 13C/12C בין איברי צמח שונים ולנתח את יחסי שיא היונים האיזוטופיים במולקולות PS VII ו-Paris saponins II (PS II) (איור 1B). המתודולוגיה שלנו, הממנפת 13מבשרי מטבוליטים משניים צמחיים המסומנים בתווית C וטכניקות ספקטרומטריית מסות חדשניות, מציעה חלופה פשוטה ומדויקת יותר לשיטות סימון איזוטופים פחמן קונבנציונליות. גישה חדשנית זו לא רק מעמיקה את הבנתנו את האיברים המעורבים בסינתזת מטבוליטים שניונית בצמחי מרפא, אלא גם מניחה בסיס מוצק למחקרים עתידיים במסלולים הביוסינתטיים של תרכובות אלה.
פרוטוקול
1. הכנה ניסיונית
- ודא כי במהלך גידול הצמח, הלחות היחסית של החממה היא 75%, טמפרטורות היום / לילה הם 20 °C / 10 °C (75 °F), תקופת הצילום מורכבת מ 12 שעות ביום ו 12 שעות בלילה, ואת עוצמת האור היא 100 μmol·m-2·s-1. מספקים קרינה באמצעות מנורות דיודה פולטות אור (LED), תוך שמירה על מרחק של 30 ס"מ בין מנורת הלד לחופת הצמח.
הערה: תקופת האור ועוצמת האור הם בהתאם למספר שעות השמש במהלך תקופת הגידול ביונאן. קרינה נמדדת באופן שגרתי על ידי חיישן קוונטי (ראו טבלת חומרים). בצע את השינויים הנדרשים בפרמטרים סביבתיים בהתאם למאפייני צמח המרפא. לאחר שתנאים סביבתיים אלה כוילו בקפידה בהתבסס על מאפייני הצמח ופרופיל אור השמש האזורי, חיוני לשמור על עקביות בסביבות אלה לאורך כל תקופת הניסוי. שינויים שרירותיים בפרמטרים הסביבתיים לאחר הקמתם הראשונית עלולים לפגוע בשלמות הניסוי ובאמינות התוצאות. - השתמש בגישה הידרופונית18 כדי להבטיח את הדיוק והספציפיות של הניסוי שלנו. ודא כי שתילי PPY שטופים בני שנתיים (שנקטפו מוונשאן, מחוז יונאן (104°11′E, 23°04′N) טבולים בריכוז סטנדרטי של 1/4 של תמיסת החומרים המזינים של Hoagland למשך 3 ימים לצורך הסתגלות.
- הכינו את תמיסת החומרים המזינים של Hoagland (ראו טבלת חומרים) בהתאם להוראות; הוסיפו 1.26 גרם אבקת Hoagland ו-0.945 גרם אבקת סידן חנקתי ל-4 ליטר מים מטוהרים. הכן את הפתרון 13C6-Glucose (ראה טבלת חומרים) כמתואר במדריך הסטנדרטי; הוסף 0.2 גרם של 13C6-Glucose אבקה לתוך 100 מ"ל של מים מטוהרים או פתרון מזין של Hoagland.
- הכינו את המיכל ההידרופוני ואת משאבת החמצן (איור 2; ראו טבלת חומרים).
הערה: במערך ההידרופוני, שימוש בתמיסת 13C6-Glucose לתיוג עוקף את ההשפעה של מיקרואורגניזמים בקרקע, ובכך מבטיח כי התמיסה תורמת ישירות לסינתזה מהירה של מטבוליטים שניוניים בצמחי מרפא. כדי לייעל את התנאים לספיגה של 13C6-גלוקוז על ידי הצמחים, זה הכרחי לווסת את קצב הזרימה של משאבת החמצן בין 4 ל 8 L / min. קצב זרימה מבוקר זה חיוני כדי למנוע מהשתילים לצוף על פני המים, מה שעלול לפגוע משמעותית ביכולתם לספוג את 13C6-Glucose ביעילות. שמירה על השתילים השקועים בעומק הנכון מאפשרת קליטה יעילה של תרכובת התיוג, ובכך מבטיחה את הצלחת תהליך סינתזת המטבוליטים במערכת ההידרופונית.
2. פעולת ניסוי תיוג פחמן
- הגדר ארבעה טיפולים ועקוב אחר איברי הסינתזה והמסלולים של PS VII ו- PS II ב- PPY כדי להוכיח שעלים הם האיבר העיקרי לסינתזה של PS.
- בטיפול 1, שתיל PPY אינו האכלה; בטיפול 2, לרסס את עלי שתיל PPY עם 0.2% 13C6-גלוקוז; בטיפול 3, להאכיל את קני שורש שתיל PPY עם 0.2% 13C6-גלוקוז; בטיפול 3, הזינו את שתיל ה-PPY בחתך הגבעול ב-0.2% 13C6-Glucose (איור 2A).
הערה: טיפול 1 מוגדר כקבוצת ביקורת. טיפול 2 מוגדר כדי להדגים כי עלים יכולים לסנתז PS. טיפולים 3 ו 4 מוגדרים כדי להדגים כי קני שורש יכולים לקחת 13C6-גלוקוז. - בטיפולים 1 ו -2, תרבית את שתילי PPY בתמיסת התזונה הרגילה של Hoagland. ריסוס 5 מ"ל של 0.2% 13C 6-תמיסת גלוקוז פעם בבוקר, אחר הצהריים והערב על עלי טיפול 2.
- בטיפולים 3 ו -4, תרבית את שתילי PPY בתמיסת ההזנה של Hoagland המכילה 0.2% 13C6-גלוקוז. בטיפול 4, השתמש באזמל (ראה טבלת חומרים) כדי לחתוך את הגבעולים של שתילי PPY מהאמצע אך שמור על צרורות כלי הדם מחוברים.
- אפשר כל טיפול להיות מסומן במשך 3 ימים, ולשנות את הפתרון מזין כל 1.5 ימים. בצע את הניסוי באמצעות עיצוב בלוק אקראי וחזור על כל טיפול 3x.
הערה: בעת ריסוס העלים, חשוב להניח נייר סופג מאחורי העלים המרוססים. זה מונע מטיפות מים ליפול לתוך התמיסה התזונתית שמתחת, מה שעלול להשפיע על תוצאות הניסוי. החתכים בגבעולים אינם מוסרים כולם, אך מחוברים אליהם צינורות הנראים לעין בלתי.
- בטיפול 1, שתיל PPY אינו האכלה; בטיפול 2, לרסס את עלי שתיל PPY עם 0.2% 13C6-גלוקוז; בטיפול 3, להאכיל את קני שורש שתיל PPY עם 0.2% 13C6-גלוקוז; בטיפול 3, הזינו את שתיל ה-PPY בחתך הגבעול ב-0.2% 13C6-Glucose (איור 2A).
3. שיטות דיגום והכנה
- אספו עלים, גבעולים, קני שורש ושורשים מכל טיפול בנפרד בסוף ניסוי 3 ימים של 13C6-Glucose. לשטוף את איברי הצמח שנאספו ביסודיות כדי להסיר זיהומים פני השטח.
הערה: היעדר שפע של 13מעלות צלזיוס ניתן למצוא על ידי ניתוח LC-MS של תמיסת הכביסה, המוכיח כי הכביסה נקייה19. - השתמשו בתנור ייבוש פיצוץ חשמלי בטמפרטורה קבועה (ראו טבלת חומרים) כדי לייבש את איברי הצמח השטופים. יש להתחיל ב-105°C למשך 30 דקות ולאחר מכן להגדיר ב-60°C עד למשקל קבוע. כתשו את איברי הצמח המיובשים לאבקה באמצעות מטחנת דגימה מהירה אוטומטית לחלוטין (ראו טבלת חומרים).
הערה: האבקה משמשת לניתוח כמותי של יחסי PS VII, II ו- 13C/12C באיברי צמח שונים. - השתמש באיזון אנליטי אלקטרוני (ראה טבלת חומרים) כדי לשקול במדויק 30 מ"ג אבקה עבור כל דגימה ומקם אותה ב -2 מ"ל של 75% V/V אתנול מים. השתמש בשואב קולי CNC (ראה רשימת חומרים) ובצע חילוץ קולי ב 25 ° C במשך 20 דקות (60 קילוהרץ), חזור על 2x; למזג את פתרונות המיצוי ולהכין שלוש דוגמאות מקבילות20.
הערה: יש למזער שגיאות במשקל הדגימה. - השתמש בחנקן כדי לייבש את תמיסת המיצוי, ולאחר מכן להמיס מתנול כרומטוגרפי לנפח של 1 מ"ל. לפני ההזרקה, השתמשו במסנן פאזה אורגנית של 0.22 מיקרומטר (ראו טבלת חומרים) לסינון (איור 2B).
הערה: אין לפוצץ את התמצית בעת ייבוש במכה עם גז חנקן; התמצית חייבת להיות מועברת דרך קרום מיקרונקבובי כדי להבטיח כי זיהומים להפריע באופן מינימלי.
4. הגדרה ותפעול LC-MS
- הגדרת MS
- הפעל את משאבת הוואקום על ידי היפוך המתג שלה למצב מופעל. פתח את השסתום הראשי על גליל גז ארגון, ולאחר מכן התאם את שסתום הלחץ החלקי כדי להשיג לחץ יעד של כ -0.3 מגפ"ס. לאחר מכן, ודא ששסתום גז החנקן נפתח גם.
- הפעל את תוכנת הבקרה MS (ראה טבלת חומרים). לחץ על מקור היינון של התרסיס האלקטרוני המחומם (מקור HESI) בלוח התוכנה והזן את הפרמטרים, כולל מתח נימי (3.0 קילו וולט למצב שלילי), טמפרטורת הנימים (350 מעלות צלזיוס), קצב זרימה של גז נדן (N2) (35 יחידות שרירותיות), קצב זרימת גז עזר (N2) (15 יחידות שרירותיות), באמצעות סריקה מלאה המבוססת על המסה המולקולרית של PS (מופעלת מ m/z 100-1,500). לחץ על כפתור החל כדי להפעיל את מקור היונים.
הערה: המתן לפחות 8 שעות כדי להבטיח מידת ואקום מספקת לתנאי הניסוי. בדוק כי לחץ הגז של ארגון וחנקן גבוה מספיק לפני הניתוח.
- הפעלה מקדימה LC
- הכינו את שלב A הנייד על ידי ערבוב 0.1% חומצה פורמית עם מים והשתמשו באצטוניטריל לשלב B הנייד (ראו טבלת חומרים). דגה בשני השלבים בסוניק אמבטיה אולטרסאונד למשך 15 דקות כדי לחסל גזים מומסים. לאחר מכן, חבר את שלב A הנייד למעבר הנוזל המתאים שלו ועשה את אותו הדבר עם שלב B הנייד. לבסוף, ערבבו תמיסת מתנול-מים ביחס 1:9 v/v עבור נוזל הניקוי ומלאו את המשאבה ואת בקבוקי המזרק באופן ידני.
הערה: התדר של סוניק אמבט אולטרסאונד הוא 40 קילוהרץ.
- הכינו את שלב A הנייד על ידי ערבוב 0.1% חומצה פורמית עם מים והשתמשו באצטוניטריל לשלב B הנייד (ראו טבלת חומרים). דגה בשני השלבים בסוניק אמבטיה אולטרסאונד למשך 15 דקות כדי לחסל גזים מומסים. לאחר מכן, חבר את שלב A הנייד למעבר הנוזל המתאים שלו ועשה את אותו הדבר עם שלב B הנייד. לבסוף, ערבבו תמיסת מתנול-מים ביחס 1:9 v/v עבור נוזל הניקוי ומלאו את המשאבה ואת בקבוקי המזרק באופן ידני.
- הקמת שיטת LC
- בחר בלחצן "הגדרת מכשיר" כדי לגשת לחלון עריכת השיטה.
- לחץ על כפתור "חדש" כדי ליזום את היצירה של שיטת מכשיר LC-MS חדשה.
- הגדר את זמן הפעולה הכולל עבור שיטת LC. לאחר מכן, הזן את הערכים הדרושים עבור מגבלת הלחץ, קצב הזרימה הכולל, שיפוע הזרימה, טמפרטורת הדגימה, טמפרטורת העמודה ודלתא הטמפרטורה המוכנה בחלון עריכת השיטה.
הערה: הגדרות שיטת המכשיר LC-MS מותאמות לניתוח העניין ולסוג עמודת הכרומטוגרפיה הנוזלית בה נעשה שימוש. לקבלת תוצאות מיטביות, השתמש בקצב זרימה של 0.3 מ"ל/דקה עם עמודת BEH C18 המתוחזקת ב-40°C (ראה טבלת חומרים). אלוציית השיפוע מוגדרת באופן הבא: התחל ב- 10% B, גדל באופן ליניארי ל - 30% B במשך 8 דקות, לאחר מכן ל- 45% B מ- 8 עד 16 דקות, ל - 50% B מ- 16 עד 24 דקות, ול- 70% B מ- 24 עד 30 דקות. מיד לאחר מכן, החזירו את השיפוע למצב התחלתי של 10% B תוך 0.1 דקות, והחזיקו אותו שם למשך 2.9 דקות נוספות. הזריקו נפח דגימה של 5 μL לכל ניתוח. הגדרות שיטת מכשיר LC-MS תלויות בחומר הספציפי שיש לנתח ובסוג עמודת הכרומטוגרפיה הנוזלית המשמשת21.
- רכישת MS
- בכרטיסיה הגדרות, בחר את סוג הניסוי כללי MS או MS n עבור תצורת שיטת MS. הזן את הערכים הדרושים כדי להגדיר את זמן הרכישה, קוטביות (חיובית או שלילית), מספר שסתום הסטת טווח המסה ומשך שסתום ההסטה. לאחר הזנת פרטים אלה, לחץ על כפתור "שמור" כדי לסיים ולשמור הגדרות אלה כשיטת מכשיר.
הערה: הגדרות ברירת המחדל ללא עמודת כרומטוגרפיה הן כדלקמן: זמן רכישה, 2 דקות; קוטביות, חיובית או שלילית; טווח מסה, 100 עד 1,500.
- בכרטיסיה הגדרות, בחר את סוג הניסוי כללי MS או MS n עבור תצורת שיטת MS. הזן את הערכים הדרושים כדי להגדיר את זמן הרכישה, קוטביות (חיובית או שלילית), מספר שסתום הסטת טווח המסה ומשך שסתום ההסטה. לאחר הזנת פרטים אלה, לחץ על כפתור "שמור" כדי לסיים ולשמור הגדרות אלה כשיטת מכשיר.
- ביצוע ספקטרומטריית מסה רב-שלבית על פי שיטות קונבנציונליות.
- השתמש תמיד במצב רכישה תלוית נתונים (DDA) לאיסוף נתונים בספקטרומטריית מסות רב-שלבית. במצב DDA, ספקטרומטר המסות מזהה את חמשת היונים החזקים ביותר במהלך כל סריקה בשלב הראשון של טרשת נפוצה טנדם, אשר לאחר מכן מקוטעים ונבחנים בשלב השני של ספקטרומטריית מסות טנדם.
הערה: ניתן להשתמש בנתוני MS ו- MS/MS שנאספו לצורך ניתוח וחיפוש במסדי נתונים לאחר מכן.
- השתמש תמיד במצב רכישה תלוית נתונים (DDA) לאיסוף נתונים בספקטרומטריית מסות רב-שלבית. במצב DDA, ספקטרומטר המסות מזהה את חמשת היונים החזקים ביותר במהלך כל סריקה בשלב הראשון של טרשת נפוצה טנדם, אשר לאחר מכן מקוטעים ונבחנים בשלב השני של ספקטרומטריית מסות טנדם.
5. רכישה, ניתוח וחישוב ידניים של נתונים
- איסוף וניתוח נתונים
- לחץ פעמיים על הקבצים הגולמיים כדי לפתוח את כל ספקטרום המסה מ- MS. חשב ידנית את ערכי ההפרש m/z בין יוני היון לבין יוני השבר המתאימים.
- ייבא את קבצי הנתונים הגולמיים של הבקרה והטיפולים לדוגמה והחסר לתוך תוכנת ניתוח ספקטרומטריית המסות כדי לזהות PSs על ידי חישוב מדויק של המסה והשברים של PS.
הערה: PS VII ו-PS II מזוהים על-ידי השוואה עם זמני שמירה ושילוב של פתרונות סטנדרטיים אותנטיים. LC-MS מזהה סדרה של פסגות קטנות במיקומים של פסגות היונים המולקולריים. היחס בין כל סדרה של פסגות יונים איזוטופיים הוא קבוע. כאשר ניתנים איזוטופים אקסוגניים של 13C, השפע הכולל של 13C בצמח גדל, והיחס בין סדרת שיאי יוני האיזוטופים של מטבוליטים שניוניים בצמח משתנה. הסובלנות המרבית של שגיאת המסה מוגדרת על 5 עמודים לדקה. - סרוק את טווח המסה m/z 500-1,500 כדי לזהות את הפסגה הבסיסית. לקבוע את המשקל המולקולרי המדויק ל -4 מקומות עשרוניים, על פי המשקל המולקולרי המדויק וזמן השמירה של מולקולת המטרה. חפש את שטח השיא של זרימת יוני איזוטופ טורי וגזור ערכים עבור M−, (M+1) −, (M+2) −, (M+3) − ו- (M+4) −. כאשר הפאזה הניידת מכילה חומצה פורמית, היונים השליליים כוללים גם (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − ו-(M+COOH+4) −.
הערה: בחירת פסגות בטווח המסה m/z 500-1,500 משפרת את הדיוק של זיהוי פסגות יונים מולקולריים עבור PS VII ו-PS II. לדוגמה, ספקטרום מסת היונים השלילית של PS VII (C51H82O21, 1030.5349) מיינן בעיקר עם יוני COOH בתערובת פורמית של חומצה-מים. יוני האיזוטופ הטורי שנצפו כוללים 1029.53−, 1030.54−, 1031.54−, 1032.55−, 1033.55−, ומשתרעים עד 1079.56−.
- חישוב נתונים
- כדי להפחית את ההשפעה של שפע טבעי של 13C, חשב את היחסים בין זרמי יונים מסומנים ללא תווית עבור כל איבר תחת טיפולים שונים, תוך התמקדות ספציפית ביחסים (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− ו- (M+4)−/ M−. כדי להבדיל בין איזוטופים מסומנים ואיזוטופים טבעיים לצורך הערכה מדויקת של שילוב 13C, חשב יחסים אלה עבור n = 1, 2, 3, 4 באמצעות משוואה (1).
יחס = A (M+2) −/ AM− (1)
נ.ב: (M+2) − כלול (M+2+COOH) − ו-(M+2) −; M− כוללים (M+COOH) - ו- M−.
הערה: כאן, M− מתייחס לאזורי השיא המשולבים של זרמי יונים עבור (M+COOH) - ו- M - בעיקר מיוננים עם COOH - במי חומצה פורמיים. A מייצג את אזור הפסגה. לדוגמה, הנוסחאות לחישוב יחסי PS VII מתוארות באופן הבא:
יחס+1= (A1030.54+A1076.55)/(A1029.53+A1075.55)
יחס +2= (A1031.54+A1077.55)/(A1029.53+A1075.55)
יחס +3= (A1032.55+A1078.56)/(A1029.53+A1075.55)
יחס+4= (A1033.55+A1079.56)/(A1029.53+A1075.55)
- כדי להפחית את ההשפעה של שפע טבעי של 13C, חשב את היחסים בין זרמי יונים מסומנים ללא תווית עבור כל איבר תחת טיפולים שונים, תוך התמקדות ספציפית ביחסים (M+1)−/ M−, (M+2)−/M−, (M+3)−/ M− ו- (M+4)−/ M−. כדי להבדיל בין איזוטופים מסומנים ואיזוטופים טבעיים לצורך הערכה מדויקת של שילוב 13C, חשב יחסים אלה עבור n = 1, 2, 3, 4 באמצעות משוואה (1).
תוצאות
כדי לאשר שאספקת 13C6-גלוקוז בקני שורש הייתה מוצלחת, ניתחנו עוד יותר את יחסי האיזוטופים של 13C/12C בקני שורש. יחסי האיזוטופים של 13C /12C בטיפולים 3 ו-4 היו גבוהים בהרבה מאלה של טיפול 2 (איור 1A). התוצאות הצביעו על כך ש-13C,6-גלוקוז מטיפול 3 ו-4 נכנסו לקני השורש באמצעות בליעה.
היחסים של 13פסגות איזוטופ C, כגון (M+1) −/M−, (M+2) −/M−, (M+3) −/M− ו-(M+4) −/M−, נשארים בדרך כלל קבועים. לתרכובות המסומנות בתוספת אקסוגנית של 13מעלות צלזיוס יש מבנה מולקולרי זהה, משקלים מולקולריים דומים, תכונות פיסיקוכימיות וזמני שמירה דומים למקבילותיהן הלא מסומנות. עם זאת, כאשר תרכובות מסומנות אלה נותחו באמצעות ספקטרומטריית מסות, היחסים של שיא יוני האיזוטופ שלהם השתנו. במחקר שלנו השתמשנו ב-LC-MS כדי לזהות PS VII ו-PS II בארבעה איברים שונים של PPY בטיפולים שונים (איור 3). בהשוואה לטיפול 1, התוצאות הצביעו על עלייה משמעותית ביחס של PS VII (M+2) −/M− בעלים של PPY שטופלו באקסוגני 13C (איור 3B). במיוחד בטיפול 2, שבו ריססו עלי PPY עם 13C 6-Glucose, PS VII מסומן בשני אטומי 13C סונתזו. אולם בטיפול 4, היחס בין מולקולות PS VII (M+2) −/M− בעלים לא הראה הבדל משמעותי בין קנה השורש לטיפול שאינו ניזון, והיחסים בין מולקולות PS VII (M+1) −/M−, (M+3) −/M−, (M+4) −/M− בגזע, קנה שורש ושורש בכל ארבעת הטיפולים לא הראו הבדלים משמעותיים (איור 3A, ג,ד). נוסף על כך, היחס בין מולקולות PS II (M+2) -/M--עלה לאט בטיפול 2 (איור 3F). לא היו הבדלים בולטים ביחסים בין מולקולות PS II (M+1) −/M− ו-(M+4) −/M− בעלים בין טיפולים 1 ו-2 (איור 3E, H), בעוד שהיחס בין מולקולות PS II (M+3) −/M− הראה ירידה ניכרת בעלים בטיפול 2 בהשוואה לטיפול 1 (איור 3G). ממצאים אלה מצביעים על כך שהסינתזה של PS VII אכן מתרחשת בעלים שטופלו ב-13C6-Glucose, בהתאמה למסלול הביוסינתטי הידוע של PSS.
הגישה שלנו מציעה את העלה כאיבר העיקרי לסינתזה של PS VII ב-PPY, בניגוד לסינתזה של PS II. יש לציין כי 13C שכותרתו PS VII נעדר בקנה-שורש לאחר טיפול בעלים עם 13C 6-Glucose, מה שמרמז על העברה איטית של PS VII מעלים לקני שורש. לעומת זאת, 13C מסומן PS II זוהה בקנה-שורש לאחר טיפולי תיוג גזע-כלי דם וקנה שורש, דבר המצביע על סינתזת קנה שורש אפשרית בשלב זה ומחייב חקירה נוספת של מיקומי הסינתזה של PS II. הזיהוי הבלעדי של יחס (M+2) −/M− עבור מולקולות PS VII בעלים תואם את הגורל המטבולי של 13C6-גלוקוז; לאחר הספיגה, הוא מטבוליזם באמצעות גליקוליזה כדי לייצר אצטיל-CoA עם שני איזוטופים 13C. בהתחשב ב-PS כתרכובת איזופרנואידית, הביוסינתזה שלה מאצטיל-CoA מתקדמת דרך החומצה המבלונית (MVA) או דרך מסלול 2-C-מתיל-D-אריתריטול-4-פוספט (MEP) (איור 4), המוביל להיווצרות PS VII (M+2) −/M. לפיכך, המחקר שלנו מגדיר את העלה כאיבר הסופי לסינתזה של PS VII ב-PPY.

איור 1: היחס בין איזוטופ 13C / 12C בקני שורש של ארבעה טיפולים. (A) היחס בין איזוטופים של 13C / 12C בקני שורש של טיפולים 4 ו-3 היה גבוה בהרבה מזה של טיפולים 1 ו-2, מה שמצביע על כך ש-13 C6-Glucose נכנסו באופן משמעותי לקני השורש באמצעות הזנת שורשים. כל עמודה מייצגת את הממוצע (± SE) של שלושה עותקים משוכפלים. משמעות האותיות על העמודות שונה באופן משמעותי ביחס של איזוטופ 13C/12C בארבעה טיפולים (p < 0.05). קיצור: PS = Paris saponins. (B) ספקטרומטריית המסה ברזולוציה גבוהה של PS VII (C51H82O21, 1030.5349) זיהתה את היון השלילי שלה עם זמן שמירה של 16.83 דקות. בשל השפע הטבעי של 13C (עם משקל מולקולרי מדויק של 13.003, לעומת 12C ב-12.000, טווח של פסגות איזוטופים כולל (M−), בעיקר (M+1)-, (M+2)-, (M+3)--ו-(M+4)-, מופיעים באותו זמן שמירה כמו שיא היונים המולקולריים PS VII M−. שיאים אלה נבעו בעיקר מיינון COOH במי חומצה פורמית. דיאגרמת עמודות מוגדלת מדגישה פסגות איזוטופים אלה. יחסי זרם היונים של (M+1)−/M−, (M+2)−/M−, (M+3)−/M− ו- (M+4)−/M− חושבו. על ידי ניתוח שינויים ביחסים אלה, אנו יכולים לעקוב ולהסיק את הביוסינתזה של ספונינים. כאן, M− ייצג את אזורי השיא המשולבים של זרם היונים עבור (M+COOH) ו- M−. איור 1B שונה מ-Wen et al.24. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.

איור 2: 13C6-Glucose תיוג וזרימת עבודה של שילוב נתונים. שתילים סומנו על ידי ריסוס והאכלה 0.2% 13C6-גלוקוז במשך 3 ימים; לאחר מכן, תמציות מכל איבר נותחו איזוטופית על ידי LC/MS ו-GC/IRMS ושולבו עם שילוב שיא ונתונים לניתוח ספציפי לאיברים של סינתזת PS. (A) תרשים סכמטי הממחיש את הזנת הגלוקוז באיברים שונים. טיפולים 1-4 היו ללא האכלה, האכלה בעלים, גבעול-כלי דם-צרור וקנה שורש, בהתאמה. (B) השלבים לניתוח LC-MS של הנוזל המופק המיוצר מרקמת PPY מיובשת באמצעות מכשיר טחינה וניפוח חנקן. קיצורים: LC/MS = כרומטוגרפיה נוזלית-ספקטרומטריית מסה; PPY = Parispolyphylla var. yunnanensis (Franch.) יד. -Mzt.; נ.ב. = פריז סאפונין. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
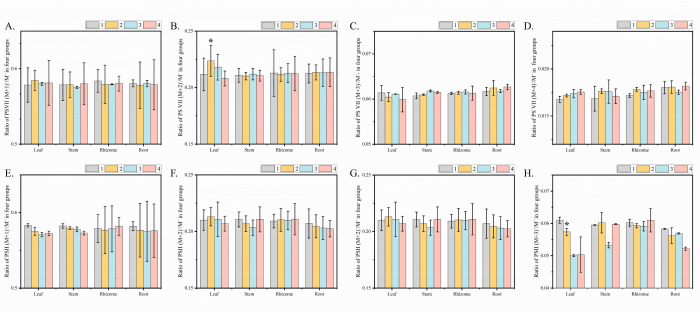
איור 3: מעקב אחר הביוסינתזה של Paris saponin VII ו-Paris saponin II באמצעות הזנה של 13C6-Glucose של איברים צמחיים. (א-ד) היחס בין מולקולות PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− בכל איבר בארבעת הטיפולים. היחס בין מולקולות PS VII (M+2) - / M - גדל משמעותית בעלים של טיפול 2 וטיפול 3. בגזע, בשורש ובקנה-שורש, היחס בין מולקולות PS VII (M+2) -/M - לא הראה הבדלים ברורים בין ארבעת הטיפולים. (ה-ה) היחס בין מולקולות PS VII (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, (M+4) −/M− בכל איבר בארבעת הטיפולים. בהשוואה לטיפול 1, היחס בין מולקולות PS II (M+2) −/ M− בעלים לא היה שונה תחת טיפול 2. בטיפול 2, היחס בין מולקולות PS II (M+1) −/M− ו-(M+4) −/M – אין הבדלים ברורים בעלים בהשוואה לטיפול 1. היחסים בין מולקולות PS II (M+3) −/M ירדו בעלים בהשוואה לטיפול 1. Paris saponin VII, PS VII. כל עמודה מייצגת את הממוצע (± SE) של שלושה עותקים משוכפלים. "*" הצביע על הבדל משמעותי מטיפול שאינו האכלה (מבחן T ב- P < 0.01). קיצור: PS = Paris saponins. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.

איור 4: תיאור של PS VII שנוצר על-ידי 13C6-גלוקוז אקסוגני שנכנס למסלול MVA. דיאגרמה סכמטית של חילוף החומרים של 13C6-גלוקוז מסומן אצטיל קואנזים A כדי ליצור מולקולות PS VII (M+2) −/M − דרך מסלול MVA. פחמן מסומן מוצג באדום; פחמן לא מסומן הוא אפור. תחת הפעולה של גליקוליזה, 13C6-גלוקוז הוא שסע לשתי מולקולות של אצטיל קואנזים A(M+2)-, אשר לאחר מכן מייצר isopentenyl pyrophosphate ו dimethyl propenyl pyrophosphate דרך מסלול MVA, ולאחר מכן מייצר atenol מחזורי באמצעות הדור הקטליטי של geranylgeranyl pyrophosphate synthase, farnesyl pyrophosphate synthase, squalene synthase, squalene epoxygenase, cycloatenol synthase Cycloartenol, לאחר מכן חמצון, decarboxylation, הפחתה ותגובות אחרות כדי להשיג כולסטרול, כולסטרול באמצעות סדרה של אנזימים cytochrome P450, glycosyltransferases ו saponin furostanoid 26-O-β-glucosidase של שינוי מאוחר של היווצרות של מולקולות PS VII המכילות שני פחמן מסומן. (M+2) - מציין כי COOH של שני פחמן הוא מיונן בשלב זה, ואת מספר התוויות עבור שני פחמן ניתן להפיק באמצעות (M+2) −/M−. באמצעות פרוטוקולים סטנדרטיים, הגוף האיזוטופי מזוהה בנפרד והזרמים היונים חולקו כדי לקבל נתוני תיוג עבור האיזוטופים. הערך של M− יציב. קיצור: PS = ספונינים פריז ; PS VII = פריז saponin VII; MVA = מסלול Mevalonate; GPPS = Geranylgeranyl pyrophosphate synthase; FPPS = Farnesyl pyrophosphate synthase; SQS = סקוואלן סינתאז; SQE = סקוואלן אפוקסיגנאז; CYPs = אנזימי Cytochrome P450; UGTs = טרנספראז גלוקורוני; F26G = Furostanoid saponin 26-O-β-glucosidase. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
דיון
היישום המוצלח של פרוטוקול זה תלוי במחקר מקיף של תכונות פיזיולוגיות של צמחים, רקמות, איברים ומטבוליטים משניים. גישת התכנון הניסויי המתוארת בפרוטוקול מניחה בסיס איתן לחקר המסלולים הביוסינתטיים של מטבוליטים שניוניים צמחיים. הגורמים הקריטיים בניסוי זה הם: (1) קביעת גיל השתילים הרב-שנתיים ו-(2) בחירת העיתוי הנכון לזיהוי תיוג-תיוג איזוטופים. צמחי המרפא מסווגים לרב-שנתיים וחד-שנתיים, כל אחד עם דפוסים שונים של סינתזת מטבוליטים משנית וצבירה. ניסוי זה נועד להבהיר את האיברים הסינתטיים העיקריים של מטבוליטים שניוניים בצמחי מרפא על ידי ניתוח קצב הסינתזה של מטבוליטים אלה. לכן, חיוני לבחור בקפידה את שנות הצמיחה והשלבים המתאימים לדפוסים ושיעורי סינתזה אלה.
PPY הוא צמח מרפא רב שנתי, ואת התוכן של PS מצטבר משנה לשנה. עם זאת, הוכח כי קצב סינתזת PS לא היה שונה מזה של PPY22 רב שנתי. יחד עם זאת, גודלם הקטן יותר של השתילים בני השנתיים בהשוואה למבוגרים מאפשר הידרופוניקה. אז, מחקר זה השתמש שתילי PPY בן שנתיים. זה מבטיח כי הצמחים שנבחרו להציג את השיעור הגבוה ביותר של סינתזת מטבוליטים משנית. חיוני להכיר בשונות בשיעורי הסינתזה וההובלה של מטבוליטים משניים בין מינים שונים23. האורך האופטימלי לתקופת זיהוי התיוג נקבע על פי שיעורים אלה. מחקרים מצביעים על כך שתכולת הסוכר וה-PS בעלי PPY יורדת תוך 3 ימים24, מה שמרמז על תהליך הובלה איטי של PS בשל משקלם המולקולרי המשמעותי, שלא סביר שיושלם במסגרת זמן זו. משך טיפול קצר מכמה שעות עלול להוביל לסינתזה לא מספקת ולקשיי זיהוי עבור PS 5,25 המסומן. לעומת זאת, הארכת הטיפול מעבר ל-3 ימים מסתכנת בהעתקת PS מהעלים לקנה השורש, מה שעלול לעוות את תוצאות הניסוי. לכן, נבחרה תקופת ביניים של 3 ימים כדי למזער את הפרעות האיברים - במיוחד עבור תרסיס עלים ושיטות תיוג קנה שורש - ובכך להבטיח תוצאות ניסוי מדויקות יותר.
מחקרי תיוג איזוטופים קודמים על Nicotiana tabacum26,27 ו- Brassica napus28 הראו ספיגה מוצלחת של 13C6-גלוקוז והשתלבות ברקמות צמחים. במחקר שלנו, התמקדנו בשתילי PPY הידרופוניים בני שנתיים, ויישמנו 13טיפולי הזנה של C6-Glucose לעלים, קני שורש וצרורות גזע-כלי דם, לצד טיפולים מבוקרים שאינם האכלה. באמצעות זיהוי LC-MS, מצאנו שביום השלישי לאחר התווית, היחס של 13C/12C בקני השורש מטיפולי האכלת גזע-כלי דם וקני-שורש היה גבוה משמעותית מאשר בבקרות ללא הזנה, מה שאישר הטמעה יעילה של 13C6-Glucose ואת ההצלחה של גישת ההתוויה שלנו (איור 2)). במחקר שלנו, ניתחנו בו-זמנית ארבעה סוגים של יחסי שיא יונים איזוטופיים עבור מולקולות PS VII ו-PS II בארבעה איברים שונים של PPY: (M+1) −/M−, (M+2) −/M−, (M+3) −/M−, ו-(M+4) −/M−. חשוב לציין שראינו שבטיפול בסימון עלים, היחסים של מולקולת PS VII (M+2) -/M- בעלים היו גבוהים משמעותית מאשר בטיפול ללא הזנה. היחס בין מולקולות PS VII (M+2) −/M− בעלים מתחת לקנה השורש לבין טיפול שאינו מזין ללא הבדל (איור 3B). בנוסף, בהשוואה לטיפול ללא הזנה, היחס בין מולקולת Paris saponins II (PS II) (M+2) −/M− בעלים תחת טיפול הזנת עלים ללא הבדל משמעותי, והיחסים בין מולקולות PS II (M+3) −/M− בעלים תחת טיפול הזנת עלים היו נמוכים יותר (איור 3G). טיפולי התיוג של צרור כלי הדם וקנה השורש הדגימו הבדלים משמעותיים ביחס של מולקולות PS II (M+1) −/M− ו-(M+4) −/M− בקני שורש בהשוואה לטיפול שאינו מזין (איור 3E, H).
בעת התאמת גישה זו לצמחי מרפא אחרים, חיוני לבחור תרכובות סמנים המותאמות למבשרי המטבוליטים המשניים העיקריים של הצמח, תוך הבטחת ספציפיות הסמן. אם תרכובת המטרה מסונתזת בעיקר בגבעול, תרכובת הסימון צריכה להיות מסוגלת להיות מועברת ביעילות אל הגבעול ומטבוליזם בו. הערך מחדש את מסלול הסינתזה אם יחסים איזוטופיים צפויים, כגון (M+2) −/M− עבור PS VII, נעדרים, מה שמאשר את התאמתן של תרכובות תיוג. ייתכן שיהיה צורך להתאים את ריכוז תרכובת הסימון בתמיסת החומרים המזינים כדי להבטיח ספיגה נאותה ושילוב בתרכובות המטרה בתוך האיבר הרצוי. פרמטרי הזיהוי LC-MS עשויים לדרוש אופטימיזציה כדי לזהות את המטבוליטים המסומנים הספציפיים בעלי העניין ביעילות. זה יכול להיות כרוך בהתאמת הגדרות ספקטרומטריית המסות, כגון מצב היינון, כדי לשפר את הרגישות והספציפיות של התרכובות הייחודיות למיני הצמחים ולאיברים הנחקרים. אם יחסי 13C/12C אינם מזוהים בקני השורש מטיפולי תיוג גזע-כלי דם וקני שורש, יש להגדיל את הריכוז של 13C 6-Glucose בתמיסת התזונה Hoagland ואת משך הסימון עד לגילוי בר השגה. שיטות האכלה של 13C6-Glucose וטכניקות אנליטיות שנקבעו במחקר זה צריכות להנחות את הניתוח והפרשנות של התוצאות לזיהוי איברי הסינתזה של מטבוליטים משניים בצמחי מרפא שונים.
13C6-Glucose הזנת ולא הזנה טיפולים עבור עלים, קני שורש, צרורות גזע כלי בניסוי זה מציעים ספציפיות רבה יותר בזיהוי איברי סינתזה של מטבוליטים משניים בהשוואה לשיטות מסורתיות תיוג איזוטופים פחמן. עם זאת, נותרו אתגרים. מגבלה מרכזית אחת היא היעדר מסגרת זמן אחת המתאימה לכולם לזיהוי תיוג המתאימה לכל צמחי המרפא. בחירת מסגרת זמן אופטימלית משפרת את יעילות ההתוויה. בנוסף, שימוש ביחסים לניתוח תוצאות מסבך את ההבחנה בין מיקומי קבוצות פונקציונליות באיזומרים גדולים ומורכבים. לפיכך, סקירת ספרות יסודית וניסויים ראשוניים מומלץ לפני השימוש במתודולוגיה זו. אסטרטגיה זו לא רק מבטיחה דיוק ויעילות, אלא גם בעלת השלכות משמעותיות על ביולוגיה ופרמקולוגיה של צמחים. שילוב שיטה זו עם ספקטרוסקופיית תהודה מגנטית גרעינית, טכניקה מובילה לניתוח מבני תרכובות אורגניות, מאפשר זיהוי מדויק של מיקומי תיוג של 13C. שיטה זו סוללת את הדרך לחקר מסלולים ביוסינתטיים של מטבוליטים שניוניים של צמחים, ומציגה גישה מפורטת ויעילה לקביעת ספציפיות איברים בסינתזה של מטבוליטים שניוניים בצמחי מרפא.
גילויים
המחברים מצהירים כי אין אינטרסים כלכליים מתחרים.
תודות
עבודה זו מומנה על ידי הקרן הלאומית למדעי הטבע של תוכנית הנוער של סין (מס '82304670).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.1% מי חומצה פורמית | מפעל ריאגנטים כימיים צ'נגדו קלונג | 44890 | |
| 13C6-אבקת גלוקוז | MERCK | 110187-42-3 | |
| אצטוניטריל | צ'נגדו קלונג מפעל ריאגנטים כימיים | 44890 | |
| AUTOSAMPLER בקבוקונים Biosharp | Biotechnology Company | 44866 | |
| BEH C18 טור | ווטרס, מילפור, MA | 1.7μ m, 2.1 * 100 מ"מ | |
| CNC אולטרסאונד מנקה | Kunshan אולטרסאונד מכשיר ושות', בע"מ | KQ-600DE | |
| Compound DiscovererTM תוכנה | Thermo Scientific, Fremont, CA | 3 | |
| Compound DiscovererTM תוכנה | תרמו סיינטיפיק, פרמונט, קליפורניה | 3 | |
| תנור ייבוש פיצוץ בטמפרטורה קבועה חשמלית | DHG-9146A | ||
| מפעל ריאגנט כימי צ'נגדו קלונג | 44955 | ||
| מטחנה מהירה מדגם אוטומטי לחלוטין | שנחאי Jingxin טכנולוגיה | Tissuelyser-48 | |
| גז כרומטוגרפיה יציבה יחס איזוטופ ספקטרומטר מסה | תרמו פישר | דלתא V יתרון | |
| פתרון הוגלנד | סיגמא-אולדריץ' | H2295-1L | |
| טנק הידרופוני | JRD | 1020421 | |
| תוכנת Isodat | Thermo Fisher Scientific | 3 | |
| כרומטוגרפיה נוזלית ספקטרומטריית מסה ברזולוציה גבוהה | Agilent Technology | אג'ילנט 1260 -6120 | |
| מכשיר לייצור חנקן | PEAK SCIENTIFIC | Genius SQ 24 | |
| מסנן פאזה אורגני | טיאנג'ין Jinteng ציוד ניסיוני ושות', בע"מ | 44890 | |
| משאבת חמצן | Magic Dragon | MFL | |
| חיישן קוונטי | Highpoint | UPRtek | |
| אזמל | יד | 11-23 | |
| התזה יכול | CHUSHI | WJ-001 | |
| Xcalibur תוכנה | תרמו פישר סיינטיפיק | 4.2 |
מקורות
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
הדפסות חוזרות והרשאות
תגיות
