אנו מציגים פרוטוקול להכנת מעבים ביומולקולריים סינתטיים המורכבים מננו-כוכבים של DNA אמפיפילי החל מהאוליגונוקלאוטידים המרכיבים את הדנ"א שלהם. קונדנסטים מיוצרים מרכיב ננו-כוכב יחיד או משני רכיבים ומותאמים כדי לקיים שעתוק חוץ גופי של RNA מתבנית DNA משובצת.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
עיבויים סינתטיים וארכיטקטורות דמויות תאים מננו-מבנים של DNA אמפיפילי
במאמר זה
סיכום
תקציר
טיפות ועיבויים סינתטיים הופכים למרכיבים נפוצים יותר ויותר של מערכות ביומימטיות מתקדמות ותאים סינתטיים, שם ניתן להשתמש בהם כדי לבסס מידור ולקיים תגובות דמויות חיים. ננו-מבנים סינתטיים של דנ"א הוכיחו פוטנציאל משמעותי כאבני בניין יוצרות עיבוי בשל צורתם הניתנת לתכנות, תפקודם הכימי והתנהגות ההרכבה העצמית שלהם. לאחרונה הוכחנו כי "ננו-כוכבים" של דנ"א אמפיפילי, המתקבלים על ידי תיוג צמתי דנ"א עם מואיטים הידרופוביים, מהווים פתרון חזק ורב-תכליתי במיוחד. ניתן לתכנת את מעבי הדנ"א האמפיפיליים המתקבלים כך שיציגו ארכיטקטורות פנימיות מורכבות ומרובות תאים, להגיב מבנית לגירויים חיצוניים שונים, לסנתז מקרומולקולות, ללכוד ולשחרר מטע"דים, לעבור טרנספורמציות מורפולוגיות ולקיים אינטראקציה עם תאים חיים. כאן, אנו מדגימים פרוטוקולים להכנת מעבי DNA אמפיפיליים החל מאוליגונוקלאוטידים של DNA מרכיבים. נתייחס (i) למערכות חד-רכיביות היוצרות מעבים אחידים, (ii) למערכות דו-רכיביות היוצרות מעבים של מעטפת הליבה, ו-(iii) למערכות שבהן המעבים מותאמים לתמיכה בשעתוק חוץ גופי של ננו-מבנים של RNA.
מבוא
תאים סינתטיים הם התקנים בקנה מידה מיקרומטרי (10-50 מיקרומטר) הבנויים מלמטה למעלה כדי לשכפל פונקציות ומבנים של תאים ביולוגיים קיימים 1,2. תאים סינתטיים קשורים לעתים קרובות על ידי ממברנות הבנויות משלפוחיות דו-שכבתיות 3,4,5,6,7, פולימרזומים 8,9, או פרוטאינוזומים10,11, אשר יכולים לשמש גם ליצירת מידור פנימי 12,13. בהשראת אברונים נטולי קרום הידועים כמקיימים תפקודים שונים בתאים חיים14, מבנים כגון קואצ'רבטים פולימריים, עיבויים ביומולקולריים והידרוג'לים צוברים תאוצה כחלופות מגוונות וחזקות לביסוס מידור חיצוני ופנימי בתאים סינתטיים 15,16,17,18.
תוך מינוף ארגז הכלים הרב-תכליתי של ננוטכנולוגיה של דנ"א19, פותחו פתרונות מרובים להנדסה של טיפות ועיבויים סינתטיים מהרכבה עצמית של ננו-מבנים מלאכותיים של דנ"א, שגודלם, צורתם, תפקודם, ערכיותם ואינטראקציות הדדיות שלהם ניתנים לתכנות מדויק20. טיפות דנ"א או מעבים הם בעלי תאימות ביולוגית ויכולים לשמש כפיגומים הן עבור תאים סינתטיים והן עבור אברונים, אירוח תגובות כימיות וביומולקולריות21, מידע חישובי22,23, לכידה ושחרור של מטענים24,25, ושמירה על תגובות מבניות26.
בין העיצובים המגוונים של ננו-מבנים יוצרי דנ"א יוצרי עיבוי, ננו-כוכבים של דנ"א אמפיפילי - המכונים כוכבי C - הוכיחו את עצמם כחזקים ורב-תכליתיים27. כוכבי C הם מוטיבים מסועפים פשוטים המורכבים מצומת דנ"א קבוע (בדרך כלל ארבע-כיווני), שממנו יוצאות זרועות דנ"א דו-גדיליות (ds)28. לאחר מכן הזרועות מכוסות במויאטים הידרופוביים, בדרך כלל כולסטרול, מה שהופך את הננו-מבנים לאמפיפיליים ומניע את העיבוי שלהם בעקבות חישול פשוט של סיר אחד. עיבוי C-star מאפשר יכולת תכנות מבנית ותפקודית מדויקת, כולל האפשרות להקים ארכיטקטורות מרובות תאים29,30, להגיב מבנית לטריגרים של DNA וקטיון31, לסנתז מקרומולקולות29, ללכוד ולשחרר מטענים32, ואינטראקציה עם תאים חיים33. להלן, נתאר ונדון בפרוטוקולים לייצור מעבים של כוכב C החל מהאוליגונוקלאוטידים המרכיבים אותם.
הפרוטוקול מסכם את ההכנה של מעבים אונאריים (רכיב אחד) ובינארי (שני רכיבים), תוך שימוש בשלושה עיצובים שונים של כוכבי C (איור 1) -"לא מגיב", "מגיב TMSD" ו-"RNA-טמפלציה". כוכב C "שאינו מגיב" (לוח A) מורכב מארבעה "גדילי ליבה" עם רצפים נפרדים היוצרים את צומת ארבעת הכיוונים. ארבעה אוליגונוקלאוטידים זהים מהונדסים בכולסטרול מחוברים לצומת, ומבטיחים שמולקולת כולסטרול נמצאת בקצה כל זרוע. כוכבי C שאינם מגיבים מהווים פיגומים פשוטים ואינרטיים עבור עיבויים אונאריים ובינאריים. בכוכב C "מגיב TMSD" (לוח B), החיבור בין גדילי הכולסטרול לבין הצומת מובטח על ידי גדיל "גשר אחיזת אצבעות", הכולל תחום "אחיזת בוהן" חד-גדילי (ss)DNA משתלשל. בנוכחות גדיל דנ"א פולש בעל תחום אחיזת אצבעות משלים, יכולה להיווצר תגובת תזוזה של גדיל בתיווך הבוהן34, שבה הפולש עוקר את גשר אחיזת הבהונות, מנתק את הקשר בין הצומת לבין המויאטים ההידרופוביים וגורם לפירוק רשת הדנ"א32. לבסוף, כוכב C "RNA templating" (לוח C) כולל שינוי "בסיס" המשלים גדיל "גשר", האחרון מקשר את תבנית ssDNA המתעתקת עבור ברוקולי aptamer29. פירוט הרצף של האוליגונוקלאוטידים המרכיבים את שלושת סוגי העיצובים של כוכבי C שהוזכרו כאן ניתן למצוא בטבלה משלימה 1 ובעבודות קודמות 29,30,32.

איור 1. סכמות של שלושה עיצובים שונים של ננו-כוכבים אמפיופיליים של דנ"א (C-stars). רצפי אוליגונוקלאוטידים עבור דוגמאות שונות של כוכבי C המתוארים כאן ניתן למצוא בטבלה משלימה 1. (A) סכמטי של כוכב C שנועד ליצור עיבויים שאינם מגיבים, עם גדילי האוליגונוקלאוטידים המרכיבים "Core 1", "Core 2", "Core 3", "Core 4", (צבועים בגוונים של ורוד) ו-"Terminal cholesterol" (צבועים בכחול). כל צבע ייחודי מייצג גדיל אוליגונוקלאוטיד בעל רצף ייחודי. "Core 1" ו-"Core 3" משלימים חלקית כל אחד את "Core 2" ו-"Core 4", אך אינם משלימים זה את זה. (B) סכמטי של כוכב C שנועד להתפרק עם הוספת גדיל פולש באמצעות תזוזת גדיל בתיווך אצבע, כמתואר בעבודה קודמת32. כוכב C זה מורכב מגדילים "Core" ו-"Terminal cholesterol" (צבועים באפור), כמו גם גדיל "Terminal complement" (מוצג בכתום) וגדיל "Toeholding bridge" (מוצג בצבע כחול כהה). האחרון מכיל תליה של שישה נוקלאוטידים שאליהם גדיל פולש מתוכנן כראוי יכול להיקשר ולאחר מכן להחליף לחלוטין את גדיל "גשר אחיזת האצבעות", מה שגורם לדיסוציאציה של צומת הננו-כוכבים המרכזי (המורכב מ"ליבה 1, 2, 3 ו-4") מהדופלקסים המורכבים מגדילים "משלים טרמינלי" ו"כולסטרול טרמינלי". (C) סכמה של כוכב C המתפקד עם תבנית DNA עבור אפטמר RNA. גם זה מורכב מגדיל "כולסטרול טרמינלי" ו"ליבה 2, 3 ו-4" (כולם מוצגים באפור), כמו גם גרסה מורחבת של גדיל "ליבה 1" (מוצג בוורוד), גדיל "בסיס" (חום), גדיל "גשר" (צהוב) ו"תבנית אפטמר" (ירוק). דופלקס הדנ"א המורכב משני הגדילים האחרונים יוצר את אזור מקדם T7 פולימראז, המסמן את אתר התחלת השעתוק. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
עיבוי כוכב C נוצר על חישול תרמי של האוליגונוקלאוטידים המרכיבים, אשר בפרוטוקול המוצג כאן מתבצע בתוך נימי זכוכית אטומים עם חתך מלבני ביחס גובה-רוחב גבוה. מיכלים אלה מציעים מספר יתרונות מרכזיים: i) איטום מבטיח שהאידוי יימנע לחלוטין בשלבי החישול (לפעמים איטיים); 2) התחתית השטוחה באיכות אופטית של הנימים מאפשרת הדמיה של ארעי ההרכבה העצמית (או הפירוק); 3) יחס הממדים הגבוה של הנימים מבטיח שהמעבים הכבדים ישקעו על פני שטח רחב ושטוח, מה שמקטין את הסיכויים להתלכדות וצבירה בשלבים מאוחרים יותר של ארעי ההרכבה העצמית שיתרחש במיכלים בצורת טריז (למשל, צינורות מיקרוצנטריפוגה), ומייצר אוכלוסיות מעובות חד-פיזוריות יחסית; 4) ביצוע החישול בנימי זכוכית מוארכים ממזער את חשיפת הדגימה לממשקים הידרופוביים (אוויר, פלסטיק או שמן), אשר נצפו כמפריעים להרכבה עצמית על ידי גיוס האוליגונוקלאוטידים האמפיפיליים. לאחר השלמת פרוטוקול ההרכבה, ניתן לחלץ קונדנסטים מנימי זכוכית לניסויים נוספים הכוללים ריאגנטים נוספים.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
הערה: הפרוטוקול מחולק לשלושה חלקים. סעיף 1 מתאר את השלבים המוקדמים, כולל הכנת אוליגונוקלאוטידים DNA ונימי זכוכית. סעיף 2 מתאר את הכנת עיבוי כוכב C בעיצובים שונים, כולל עיצובים של רכיב אחד ושני רכיבים, והוצאתם מנימי הזכוכית. סעיף 3 מתאר את השימוש בעיבוי כוכב C חד-רכיבי של RNA לסינתזה של אפטמר RNA. על המשתמש להקפיד על נוהלי מעבדה טובים לאורך כל הדרך, לוודא שכל הערכות הסיכונים והפחתות הסיכונים הדרושות מתקיימות, וללבוש ציוד מגן אישי (PPE) מתאים, כולל כפפות, משקפי בטיחות ומעיל מעבדה. ניקוי צינורות נימי זכוכית דורש סוניקציה שלהם, תחילה בתמיסה פעילי שטח ושנית באיזופרופנול או אתנול. הפקת עיבוי כוכב C מצינורות נימים דורשת שימוש בעט שרבוט יהלום כדי להבקיע ולהצמיד את הזכוכית, עם סיכון נלווה לפציעה משברי זכוכית. חומרים, ציוד וריאגנטים עיקריים שבהם נעשה שימוש מפורטים בטבלת החומרים. רוב האוליגונוקלאוטידים שאינם מתפקדים מטוהרים על ידי הספק באמצעות התפלה סטנדרטית, למעט גדילי "ליבה מורחבת 1" ו"תבנית אפטמר", המוזמנים עם טיהור אלקטרופורזה של ג'ל פוליאקרילאמיד (PAGE). אוליגונוקלאוטידים מהונדסים בכולסטרול מטוהרים על ידי הספק באמצעות כרומטוגרפיה נוזלית בעלת ביצועים גבוהים (HPLC) בשלב ההפוך.
1. תנאים מוקדמים
הערה: יש להכין את הפתרונות הבאים במים אולטרה-טהורים (סוג I) ולסנן אותם באמצעות מסנני מזרקים של 0.22 מיקרומטר: מאגר Tris-EDTA (TE), הכולל 10 mM Tris, 1 mM EDTA, ב-pH ~8.0; חיץ TE בתוספת 2 M NaCl; וחיץ TE בתוספת 0.3 M NaCl. יש להשתמש בתמיסות חיץ תוך שבועיים מההכנה ולאחסן בטמפרטורה של 4°C כאשר אינן בשימוש. בנוסף, תמיסה של 1 vol% של חומר ניקוי אופטי אלקליין במים טהורים במיוחד ישמש לניקוי נימי הזכוכית.
- הכנת אוליגונוקלאוטידים של DNA ממצב lyophilized
- צנטריפוגה קצרה (2000 x גרם עבור 10-30 שניות) צינורות של אוליגונוקלאוטידים DNA lyophilized כדי להבטיח כדוריות של DNA lyophilized לאסוף בתחתית.
הערה: הצנטריפוגה נעשית בטמפרטורת החדר (RT) למשך 10-30 שניות. ברירת המחדל של מיני צנטריפוגה המשמשת כאן היא 2000 x גרם (6000 סל"ד). - הוסף את הכמות המתאימה של חיץ TE כדי ליצור מחדש כל אוליגונוקלאוטיד ב 100 מיקרומטר. מערבול ביסודיות כדי להבטיח המסה מלאה, ולאחר מכן סובב צינורות למטה כדי לאסוף את כל הנוזלים לפי שלב 1.1.1.
- עבור כל תמיסת מלאי, למדוד ספיגה ב 260 ננומטר ולחשב את הריכוז הסופי באמצעות מקדם ההכחדה של רצף אוליגונוקלאוטיד הנבדק.
הערה: מקדם ההכחדה עבור רצף אוליגונוקלאוטידים נתון נמצא בדרך כלל בגיליון הנתונים של הספק, אך ניתן לחשב אותו גם באמצעות כלים מקוונים באמצעות מודל השכן הקרוב ביותר35 או ערכים טבולים של מקדם ההכחדה של נוקלאוטידים בודדים36. - אחסנו את האוליגונוקלאוטידים המיובשים בטמפרטורה של 4°C לפרקי זמן קצרים (עד שבוע) או בטמפרטורה של -20°C לאחסון לטווח ארוך יותר (עד 6 חודשים).
- צנטריפוגה קצרה (2000 x גרם עבור 10-30 שניות) צינורות של אוליגונוקלאוטידים DNA lyophilized כדי להבטיח כדוריות של DNA lyophilized לאסוף בתחתית.
- ניקוי צינורות נימי זכוכית
- סוניק בחומר ניקוי אופטי אלקליין 1% עבור רכיבים אופטיים במים שעברו דה-יוניזציה.
- קחו את המספר הדרוש של צינורות נימי זכוכית לניקוי והניחו אותם במיכל גבוה וצר (למשל, או צינור צנטריפוגה של 15/50 מ"ל) כך שהנימים לא ישכבו שטוחים על בסיס המיכל.
- מוסיפים את חומר הניקוי למיכל, ממלאים אותו ממש מעל רמת צינורות הנימים. ודא שאין בועות אוויר כלואות בתוך צינורות הנימים - הקש כדי להסיר, במידת הצורך. כסו באופן רופף את המיכל (למשל, ברדיד אלומיניום או באמצעות מכסה צינור הצנטריפוגה, כדי לוודא שהוא אינו אטום היטב).
- כוונו אמבט מים סוני לטמפרטורה של 40°C, הניחו את המיכל המכוסה זקוף לתוך האמבטיה ובצעו סוניקציה למשך 30 דקות. ודא שנייר הכסף, אם נעשה בו שימוש, אינו בא במגע עם המים באמבט הסוניקציה.
הערה: ברירת המחדל של אמבט הסוניק המשמשת במחקר זה היא תדר סוניקציה של 60 הרץ ועוצמת סוניקציה של 150 W.
אזהרה: לעולם אין להוסיף או להסיר פריטים מאמבט סוניקציה בזמן ריצה; השהה תמיד תחילה את הפרוטוקול. - לאחר השלמת הסוניקציה, כבו את גוף החימום של אמבט המים הסוניקטיבי, ולאחר מכן שטפו היטב את הנימים במיכל במים נטולי יונים, או טהורים במיוחד - לפחות חמש פעמים, והשליכו את מי השטיפה בכל פעם.
- סוניק בחומר ניקוי אופטי אלקליין 1% עבור רכיבים אופטיים במים שעברו דה-יוניזציה.
- סוניק באיזופרופנול או אתנול.
- לצינורות נימי הזכוכית במיכל הניקוי, הוסיפו איזופרופנול או אתנול (מינימום 70%), מילוי עד קצת מעל רמת צינורות הנימים. כמו בשלב 1.2.1.2, ודא שאין בועות אוויר כלואות בצינורות הנימים וכסה באופן רופף את המיכל.
- הניחו את המיכל זקוף לתוך אמבט הסוניק וסוניקו למשך 15-30 דקות.
זהירות: איזופרופנול ואתנול דליקים, עם נקודות הבזק מתחת ל-RT. צמצמו את נפחי הממסים המשמשים במהלך הניקוי על ידי בחירת מיכל בגודל מתאים, ודאו שהמכלים מכוסים באופן רופף, ואל תשאירו את אמבט הסוניק ללא השגחה בשלב זה. - לאחר השלמת הסוניקציה, יש להיפטר כראוי מהאיזופרופנול או האתנול ולייבש את הנימים תחת חנקן, תוך טיפול בהם עם רקמה נטולת מוך.
2. הכנה ומיצוי של עיבוי כוכב C (איור 2)
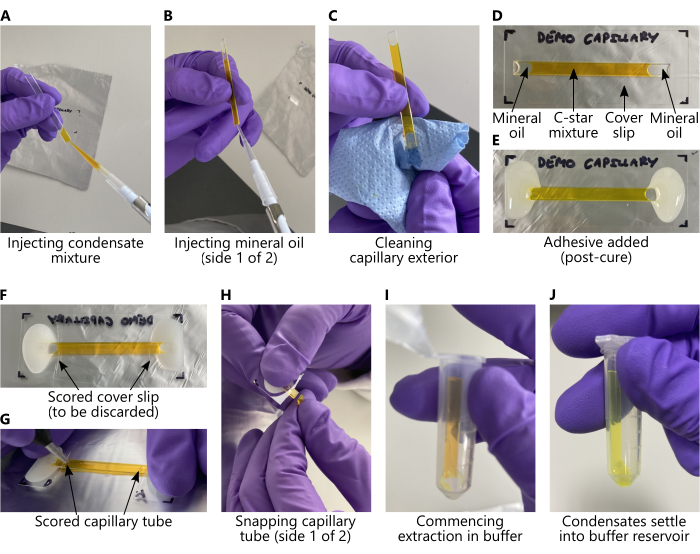
איור 2: העמסת תערובות כוכבי C וחילוץ קונדנסטים מצינורות נימי זכוכית. בכל הפאנלים, תערובת כוכב C הוחלפה בתמיסה מימית של 25 mM calcein כדי לסייע בראות. (א-ה) צעדים מרכזיים, על מנת שיינקטו לפני החישול, בהתאם לסעיפי הפרוטוקול 2.1 ו-2.2. (פ-י) צעדים מרכזיים, על מנת שיינקטו לאחר החישול, בהתאם לפרוטוקול סעיף 2.3. במהלך השאיבה (פאנלים (I-J)), עיבוי DNA ישקע מהנימים לתוך מאגר החיץ כל עוד צינור המיקרוצנטריפוגה מאוחסן אנכית. קונדנסטים לא יהיו גלויים לעין בלתי. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
- הכנת תערובות C-star לעיבויים חד-רכיביים
הערה: פרטי רצף עבור עיצובים שונים של רכיבים בודדים ניתן למצוא בטבלה משלימה 1 ובעבודות קודמות 29,30,32. פרוטוקולי החישול האיטי שהוגדרו בשלבים 2.1.9 ו-2.2.2 פותחו כדי להבטיח את הרפיית רשתות הננו-כוכבים למורפולוגיה קומפקטית, בהתחשב בתכונות הריאולוגיות תלויות הטמפרטורה של רשתות ננו-כוכבים37.- רכיבי אוליגונוקלאוטיד וחיץ ישתנו בהתאם לעיצוב כוכב C הרצוי. הכינו תערובת של 60 μL של עיבוי כוכב C חד-רכיבי בריכוז של 5 מיקרומטר עבור כוכב C בעל ארבע זרועות שאינו מגיב, כוכב C המגיב ל-TMSD או כוכב C בעל טמפלציה של רנ"א.
- עבור כל עיצוב, יש להכניס את הרכיבים המתאימים המפורטים בטבלה משלימה 2 לצינור מיקרוצנטריפוגה נפרד ולערבב היטב באמצעות פיפטינג.
הערה: כל תמיסות מלאי האוליגונוקלאוטידים מניחות להיות בריכוז של 100 מיקרומטר ב- TE. - משכו בזהירות את כל 60 μL של תמיסת כוכב C ופיפטה כדי להזריק את התערובת לתוך צינור נימי הזכוכית הנקי והיבש כפי שמוצג באיור 2A, תוך הקפדה על מניעת החדרת בועות אוויר.
- באמצעות פיפטה, הזריקו כ-9-12 מיקרוליטר של שמן מינרלי לכל קצה של צינור הנימים, וסגרו את הדגימה כך שאין ממשק חופשי בין תמיסת כוכב C לבין האוויר (ראו איור 2B). לאחר מכן, יבשו בזהירות את צינור הנימים עם נייר טישו כדי לוודא שאין שמן בחלק החיצוני שלו (איור 2C), והקפידו לא לנדף שמן מינרלי או תמיסת כוכב C מתוך צינור הנימים. התוצאה הסופית מודגמת באיור 2D.
- הכינו אצווה קטנה של דבק אפוקסי בשני חלקים כדי להדביק כל קצה של צינור הנימים, הצד השטוח כלפי מטה, לכיסוי זכוכית. ודאו שפתחי הצינור מכוסים לחלוטין בדבק, ויוצרים אטם רציף, כפי שמוצג באיור 2E.
- מניחים בצד לריפוי למשך 3 שעות לפחות, אך עדיף למשך הלילה.
- לאחר ~ 30 דקות של ריפוי, בדוק את שכבת הדבק לנוכחות רווחים באטם הנגרמים על ידי בועות אוויר. אם אלה קיימים, לאטום אותם באמצעות כמות קטנה של דבק.
- עטפו את צינור הנימים המודבק למכסה ברדיד פח, וודאו שנייר הכסף נשמר שטוח בחלק התחתון של חלקת כיסוי הזכוכית. רדיד הכסף מבטיח מגע תרמי טוב בין אותו גוף לבין גוף החימום של המחזור התרמי (ראה שלב הבא).
- הכניסו את הדגימה העטופה למחזור תרמי ולאנל באמצעות הפרוטוקול הבא: החזיקו ב-95°C למשך 30 דקות, לאחר מכן קררו מ-85°C ל-50°C ב--0.04°C·min-1, ולאחר מכן קררו מ-50°C ל-RT ב-0.5°C·min-1.
- אחסנו את העיבוי של כוכב C בטמפרטורה של 4°C או RT לפרקי זמן ממושכים (חודשים) כל עוד הנימים נשארים אטומים, מכיוון שהחישול התרמי מעקר ביעילות את הדגימה ומנטרל נוקלאזות. שמור על הנימים שטוחים במהלך האחסון והטיפול כדי למנוע משקעים מעובים לכיוון קצה אחד ומצטברים.
- הכנת תערובות כוכב C לעיבויים בינאריים
הערה: כדי ליידע את הבחירה של אוכלוסיות כוכבי C עבור מערכות בינאריות, עיין בעבודה של Malouf et al., המתארת את כללי התכנון ואת התנהגות הפאזה הצפויה של עיבוי בינארי של כוכב C30.- להכנת עיבויים בינאריים, שלבו נפחים של 30 μL של תערובות כוכבי C המתוארות בשלב 2.1 לעיל לנפח כולל של 60 μL, ערבבו היטב, טענו לנימים ובצעו את השלבים 2.1.4-2.1.8.
- הכניסו את הדגימה העטופה למחזור תרמי ואנאלי באמצעות הפרוטוקול הבא: החזיקו בטמפרטורה של 95°C למשך 30 דקות, לאחר מכן קררו מ-85°C ל-40°C ב--0.01°C·min-1, ולאחר מכן קררו מ-40°C ל-RT ב-0.1°C·min-1.
- מיצוי של עיבוי כוכב C מצינורות נימים.
- הכינו צינור מיקרוצנטריפוגה גדול (1.5 מ"ל או 2.0 מ"ל) המכיל 60 μL של 0.3 M NaCl במאגר TE.
- שחררו את הדגימה הנימית והשתמשו בעט שרבוט יהלום כדי להבקיע את החלק התחתון של הכיסוי בכל קצה פנימי של האזור המודבק (איור 2F). יש לנתק את הכיסוי באזור זה ולהשליך בהתאם.
- לנקות היטב את צינורות נימים עם אתנול יבש.
- דרגו כל קצה של צינורות הנימים בעזרת עט שרבוט היהלום, תחילה עם החלק התחתון (איור 2G), ואז הפכו וניקוד את הצינורות "ימינה".
- ודא שקווי הניקוד אינם חופפים את ממשק שמן-מים. הם חייבים להיות בתוך האזור המימי כדי למנוע שמן להישאר בדגימה שחולצה.
- נתקו את קצות צינורות הנימים (איור 2H), שמרו על החלק המרכזי של הצינור והשליכו את השאר. הכניסו את הצינור הנימי החתוך לתוך צינור המיקרוצנטריפוגה שהוכן בשלב 2.3.1, וודאו שתחתית הצינור הנימי יוצרת מגע עם תמיסת החיץ (איור 2I).
- הקונדנסטים ישקעו מהצינור אל מאגר החיץ באמצעות כוח הכבידה; אפשרו לזה להתרחש במשך 10 דקות לפחות (איור 2J). הסר את צינור הנימים החתוך והשלך אותו כראוי. גישת מיצוי עדינה זו מגבילה את הסיכון לצבירת עיבוי.
3. שעתוק של אפטמר RNA מהתעבות כוכב C המתבונן ב-RNA
הערה: לייצור אפטמר RNA ברוקולי, נדרשת תמיסה של difluoro-4-hydroxybenzylidene imidazolidinone (DFHBI) - אבקת DFHBI מוכנה תחילה כתמיסת מלאי ב -10 mM בדימתיל סולפוקסיד (DMSO), אשר לאחר מכן מדולל ל -600 מיקרומטר במים נטולי RNase ו- DNase.
- שטיפת RNA טמפלציה של כוכב C מתעבה
הערה: מעבים בעלי טמפלציה של רנ"א מסוג C-star נשטפים שלוש פעמים כדי להבטיח הסרה של אוליגונוקלאוטידים לא מאוגדים בתבנית.- הניחו לתמיסה של המעבים שחולצו להסתפק במשך 5 דקות לפחות, ולאחר מכן הסירו כמחצית מנפח הסופרנטנט.
- לקבלת נפח של 60 μL של קונדנסטים שחולצו, יש להסיר בין 25-30 μL של הסופרנטנט.
- פיפטה מהחלק העליון של רמת הנוזל כדי למזער את מספר העיבויים שהוסרו במהלך שלב זה.
- הוסף את אותו נפח של 0.3 M NaCl ב- TE כדי להחליף את הסופרנאטנט שהוסר וערבב על ידי פיפט.
- חזור על שני השלבים הקודמים במשך שלושה מחזורים בסך הכל.
- הניחו לתמיסה של המעבים שחולצו להסתפק במשך 5 דקות לפחות, ולאחר מכן הסירו כמחצית מנפח הסופרנטנט.
- הכנת תערובת שעתוק T7
הערה: תערובת התמלול T7 מוכנה באמצעות ערכת התמלול CellScript T7-FlashScribe. שלב 3.2.2 הוא שינוי של פרוטוקול היצרן, אשר ניתן למצוא כאן38. כאן אנו מתארים את התעתיק של אפטמר RNA ברוקולי, אשר משרה פלואורסצנטיות ב- DFHBI בעת הקשירה. עבור אפטמרים מוארים אחרים, החלף את עוצמת הקול של DFHBI המתוארת בשלב 3.2.2 בפלואורוגן המתאים. עבור תמלילים אחרים, הסר רכיב זה לחלוטין.- הכן תמיסת מלאי של 10 mM DFHBI ב- DMSO, ולאחר מכן דלל aliquot לריכוז סופי של 600 מיקרומטר באמצעות מים נטולי RNase ו- DNase.
- הפשיר את רכיבי ערכת התמלול על קרח ולאחר מכן פיפט את הדברים הבאים לתוך צינור מיקרוצנטריפוגה autoclaved בטמפרטורת החדר באמצעות קצוות פיפטה סטריליים: 2 μL של 10x T7-Transcription Buffer (מסופק בערכת התעתוק), 1.8 μL של 100 mM ATP, 1.8 μL של 100 mM CTP, 1.8 μL של 100 mM UTP, 1.8 μL של 100 mM GTP, 2 μL של 100 mM DTT, 2 μL של 600 μM DFHBI, 0.5 μL של מעכב RNase, 2 μL של תמיסת אנזים T7 (מסופק בערכת השעתוק).
- מערבבים בעדינות את התמיסה על ידי פיפט.
- השתמש בתערובת שעתוק לשלב 3.3 (סינתזה של תעתיק RNA) מיד לאחר ההכנה.
- סינתזה של תעתיק RNA
- לתוך תא המתאים להדמיית מיקרוסקופיה, פיפטה 3.3 μL של המעבים שטופים שהוכנו מכוכבי C המתבוננים ב-RNA ומוסיפים את הנפח הכולל של תערובת השעתוק שהוכנה מראש.
- קבל תמונות מיקרוסקופיה למשך 18 שעות, החל מיד לאחר הוספת תערובת התמלול למעבים.
הערה: הגדרות המיקרוסקופ תלויות במערכת המוכנה. ודא כי הגדרות העירור והפליטה המתאימות משמשות לכל פלואורופורים בדגימה, יחד עם זמני חשיפה שלא יובילו לרוויה עם התקדמות התמלול. באשר לכל הילוך זמן, יש למצוא פשרה בין עוצמת לייזר או LED גבוהה מספיק עבור אות טוב תוך מזעור הסיכון של photobleaching. הלבנה על פני פרקי זמן ארוכים תמוזער במערכות מבוססות LED בהשוואה למערכות מבוססות לייזר. מרווחי הדמיה מומלצים: 20 דקות במשך השעתיים הראשונות, ו-30 דקות לאחר מכן.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
לאחר החישול, ניתן לצלם עיבוי כוכב C ישירות בצינור הנימים, או לאחר החילוץ, כדי לאשר את היווצרותם. עבור כל וריאציות העיצוב של כוכב C, יש לצפות בעיבויים כדוריים או פוליהדרליים מובהקים בקוטר של כ-10-50 מיקרומטר, כאשר האחרון נוצר כאשר מתרחשת התגבשות28,32. עבור מעבים חד-רכיביים, המעבים צריכים להיות בדידים ואחידים במראהם, ועשויים להיראות פוליהדרליים (איור 3A) או כדוריים (איור 3B,C), בהתאם לעיצוב כוכב C שבו נעשה...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
הפרוטוקול המתואר כאן מספק גישה להכנת מעבים של רכיב אחד או שניים מננו-כוכבים של דנ"א אמפיפילי, עם וריאציות תכנון להחדרת תגובות שונות למעבים. הפרוטוקול הנתון מייצר עיבויים בתמיסת חיץ של 0.3 M NaCl ב- TE, אך ניתן לתקן את תנאי המאגר על ידי שינוי מתאים של אמצעי האחסון המפורטים לעיל. עבודות קודמות חקרו את היווצרותם של עיבויים של כוכב C ב-0.2 M NaCl ב-TE ו-0.1 M NaCl ב-TE ובמלח חוצץ פוספט (PBS)32. המעבים של כוכב C מיוצרים בריכוז סופי של 5 מיקרומטר, אך גם זה יכול להשתנות על ידי שינוי מתאים של ריכוזי אוליג...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
לא הוכרז על ניגוד עניינים.
תודות
LM, LDM ו-DT מאשרים תמיכה ממועצת המחקר האירופית (ERC) במסגרת תוכנית המחקר והחדשנות Horizon 2020 (ERC-STG No 851667 - NANOCELL). LDM מכיר בתמיכה ממענק מחקר של החברה המלכותית לעמיתי מחקר (RGF/R1/180043) ובתמיכה ממלגת מחקר של אוניברסיטת החברה המלכותית (UF160152, URF/R/221009).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 0.22 μ מסנני מזרק | m סיגמא-אולדריץ' | SLGVR33RB | |
| 24 x 60 מ"מ #1.5 משקפי כיסוי מלבניים, Menzel Glä ser | VWR | 631-0853 | |
| 2-פרופנול | סיגמא-אולדריץ' | 34683 | |
| 6 ליטר מנקה אולטרסאונד עם טיימר דיגיטלי וחום, 230 VAC | Cole-Parmer | WZ-08895-11 | |
| דבק מהיר Araldite 2 חלק דבק אפוקסי | RS | ARA-400005 | |
| Bio-Rad C1000 מחזורי תרמי | Bio-Rad | 1851197 | |
| מותג מיקרוצנטריפוגה צינור 2 מ"ל עם מכסה נעילה | פישר סיינטיפיק | 15338665 | 2 מ"ל צינורות מיקרוצנטריפוגה למיצוי עיבוי C-star |
| עט שרבוט יהלום | RS | 394-217 | |
| דיפלואורו-4-הידרוקסיבנזילידן אימידזולידינון (DFHBI) | סיגמא-אולדריץ' | SML1627 | |
| דימתיל סולפוקסיד (DMSO) | סיגמא-אולדריץ' | 472301 | |
| אפנדורף PCR נקי חסר צבע צינורות צנטריפוגה Safe-Lock | Fisher Scientific | 0030123301 | צינורות מיקרוצנטריפוגה 0.5 מ"ל להכנת תערובות C-star |
| אתנול אבסולוט 99.8+% | פישר סיינטיפיק | 10437341 | 70% אתנול מספיק למטרות ניקוי |
| פישרברנד ZX4 IR מערבולת מיקסר | פישרברנד | 13284769 | |
| Hellmanex III | Hellma | 9-307-011-4-507 | |
| נימים מלבן חלול מזהה 0.40 x 4.00 מ"מ, אורך 50 מ"מ | CM Scientific | 2540-50 | |
| שמן מינרלי | סיגמא-אולדריץ' | 69794 | |
| מיני צנטריפוגה, 230 V | PRISM(TM) | ||
| NaCl | Sigma-Aldrich | S3014 | |
| NanoDrop ספקטרופוטומטר אחד | תרמו פישר מדעי | ND-ONE-W | משמש למדידת ספיגה של אוליגונוקלאוטידים לחישובי ריכוז, |
| אוליגונוקלאוטידים | טכנולוגיות DNA משולבות | רצפי אוליגונוקלאוטידים מותאמים אישית ייחודיים לעיצוב כוכב C הנדרש. | |
| מעכב ScriptGuard RNase | CELLSCRIPT | C-SRI6310K | מעכב RNase |
| ערכת תמלול T7-FlashScribe | Cambio | C-ASF3507 | |
| Tris-EDTA, פתרון מלאי 100x | Sigma-Aldrich | 574793 | |
| UltraPure DNase/RNase ללא מים מזוקקים | Invitrogen | 10977035 | |
| VWR Spec-Wipe 3 מגבים | VWR | 21914-758 |
מקורות
- Buddingh', B. C., Hest, J. C. M. v Artificial cells: Synthetic compartments with life-like functionality and adaptivity. Acc Chem Res. 50 (4), 769-777 (2017).
- Fanalista, F., et al. Shape and size control of artificial cells for bottom-up biology. ACS Nano. 13 (5), 5439-5450 (2019).
- Dora Tang, T. -Y., et al. Fatty acid membrane assembly on coacervate microdroplets as a step towards a hybrid protocell model. Nat Chem. 6 (6), 527-533 (2014).
- Deshpande, S., et al. Spatiotemporal control of coacervate formation within liposomes. Nat Commun. 10 (1), 1800(2019).
- Rubio-Sánchez, R., et al. Thermally driven membrane phase transitions enable content reshuffling in primitive cells. J Am Chem Soc. 143 (40), 16589-16598 (2021).
- Jahnke, K., Huth, V., Mersdorf, U., Liu, N., Göpfrich, K. Bottom-up assembly of synthetic cells with a DNA cytoskeleton. ACS Nano. 16 (5), 7233-7241 (2022).
- Tran, M. P., et al. A DNA segregation module for synthetic cells. Small. 19 (13), 2202711(2023).
- Mason, A. F., Buddingh', B. C., Williams, D. S., Hest, J. C. M. v Hierarchical self-assembly of a copolymer-stabilized coacervate protocell. J Am Chem Soc. 139 (48), 17309-17312 (2017).
- Gumz, H., et al. Toward functional synthetic cells: In-depth study of nanoparticle and enzyme diffusion through a cross-linked polymersome membrane. Adv Sci. 6 (7), 1801299(2019).
- Huang, X., Patil, A. J., Li, M., Mann, S. Design and construction of higher-order structure and function in proteinosome-based protocells. J Am Chem Soc. 136 (25), 9225-9234 (2014).
- Booth, R., Qiao, Y., Li, M., Mann, S. Spatial positioning and chemical coupling in coacervate-in-proteinosome protocells. Angew Chem Int Ed Engl. 58 (27), 9120-9124 (2019).
- Hindley, J. W., et al. Light-triggered enzymatic reactions in nested vesicle reactors. Nat Commun. 9 (1), 1093(2018).
- Zubaite, G., Hindley, J. W., Ces, O., Elani, Y. Dynamic reconfiguration of subcompartment architectures in artificial cells. ACS Nano. 16 (6), 9389-9400 (2022).
- Hirose, T., et al. A guide to membraneless organelles and their various roles in gene regulation. Nat Rev Mol Cell Biol. 24 (4), 288-304 (2023).
- Guindani, C., Silva, L. C. d, Cao, S., Ivanov, T., Landfester, K. Synthetic cells: From Simple Bio-Inspired Modules to Sophisticated Integrated Systems. Angew Chem Int Ed Engl. 61 (16), e202110855(2022).
- Adamala, K. P., et al. Present and future of synthetic cell development. Nat Rev Mol Cell Biol. 25 (3), 162-167 (2023).
- Allen, M. E., et al. Biomimetic behaviors in hydrogel artificial cells through embedded organelles. Proc Natl Acad Sci U S A. 120 (35), e2307772120(2023).
- Cook, A. B., Novosedlik, S., Hest, J. C. M. v Complex coacervate materials as artificial cells. Acc Mater Res. 4 (3), 287-298 (2023).
- Seeman, N. C., Sleiman, H. F. DNA nanotechnology. Nat Rev Mater. 3, 17068(2018).
- Takinoue, M. DNA droplets for intelligent and dynamical artificial cells: from the viewpoint of computation and non-equilibrium systems. Interface Focus. 13 (5), 20230021(2023).
- Liu, W., Lupfer, C., Samanta, A., Sarkar, A., Walther, A. Switchable hydrophobic pockets in DNA protocells enhance chemical conversion. J Am Chem Soc. 145 (13), 7090-7094 (2023).
- Wilner, O. I., Willner, I. Functionalized DNA nanostructures. Chem Rev. 112 (4), 2528-2556 (2012).
- Gong, J., Tsumura, N., Sato, Y., Takinoue, M. Computational DNA droplets recognizing miRNA sequence inputs based on liquid-liquid phase separation. Adv Funct Mater. 32, 2202322(2022).
- Jeon, B. -J., Nguyen, D. T., Saleh, O. A. Sequence-controlled adhesion and microemulsification in a two-phase system of DNA liquid droplets. J Phys Chem. 124 (40), 8888-8895 (2020).
- Sato, Y., Sakamoto, T., Takinoue, M. Sequence-based engineering of dynamic functions of micrometer-sized DNA droplets. Sci Adv. 6 (23), 3471(2020).
- Saleh, O. A., et al. Vacuole dynamics and popping-based motility in liquid droplets of DNA. Nat Commun. 14 (1), 3574(2023).
- Rubio-Sánchez, R., Fabrini, G., Cicuta, P., Michele, L. D. Amphiphilic DNA nanostructures for bottom-up synthetic biology. Chem Commun. 57 (95), 12725-12740 (2021).
- Brady, R. A., Brooks, N. J., Cicuta, P., Di Michele, L. Crystallization of amphiphilic DNA C-Stars. Nano Lett. 17 (5), 3276-3281 (2017).
- Leathers, A., et al. Reaction-diffusion patterning of DNA-based artificial cells. J Am Chem Soc. 144 (38), 17468-17476 (2022).
- Malouf, L., et al. Sculpting DNA-based synthetic cells through phase separation and phase-targeted activity. Chem. 9 (11), 3347-3364 (2023).
- Fabrini, G., Minard, A., Brady, R. A., Antonio, M. D., Michele, L. D. Cation-responsive and photocleavable hydrogels from noncanonical amphiphilic DNA nanostructures. Nano Lett. 22 (2), 602-611 (2022).
- Brady, R. A., Brooks, N. J., Foderà, V., Cicuta, P., Di Michele, L. Amphiphilic-DNA platform for the design of crystalline frameworks with programmable structure and functionality. J Am Chem Soc. 140 (45), 15384-15392 (2018).
- Walczak, M., et al. Responsive core-shell DNA particles trigger lipid-membrane disruption and bacteria entrapment. Nat Commun. 12 (1), 4743(2021).
- Zhang, D. Y., Winfree, E. Control of DNA strand displacement kinetics using Toehold exchange. J Am Chem Soc. 131 (47), 17303-17314 (2009).
- Integrated DNA Technologies OligoAnalyzer Tool. , Available from: https://www.idtdna.com/pages/products/custom-dna-rna/dna-oligos/custom-dna-oligos (2024).
- Cavaluzzi, M. J., Borer, P. N. Revised UV extinction coefficients for nucleoside-5'-monophosphates and unpaired DNA and RNA. Nucleic Acids Res. 32 (1), e13(2004).
- Lattuada, E., Caprara, D., Piazza, R., Sciortino, F. Spatially uniform dynamics in equilibrium colloidal gels. Sci Adv. 7 (49), (2021).
- T7-FlashScribeTM Transcription Kit. , Available from: https://www.cellscript.com/products/018pl0617CS.pdf (2017).
- Zadeh, J. N., et al. NUPACK: Analysis and design of nucleic acid systems. J Comput Chem. 32 (1), 170-173 (2011).
- Walczak, M., Brady, R. A., Leathers, A., Kotar, J., Di Michele, L. Influence of hydrophobic moieties on the crystallization of amphiphilic DNA nanostructures. The Journal of Chemical Physics. 158 (8), 084501(2023).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
