מאמר זה מכסה את ההליכים לגרימת תגובות לחץ באמצעות מתח ריסון פיזי בעכברים וחולדות. נדונים שיקולים נוספים שיש להקפיד עליהם בעת בחירה ושימוש במתח ריסון במודלים של מכרסמים.
במאמר זה
סיכום
תקציר
בכל מיני בעלי החיים, חשיפה לתנאי לחץ גורמת לתגובות לחץ. שיטה אחת לחקור את השפעות הלחץ באמצעות מודלים של מכרסמים היא הליך לחץ ריסון. לחץ ריסון שימש במשך עשרות שנים כדי לחקור שינויים בפיזיולוגיה, גנטיקה, נוירוביולוגיה, אימונולוגיה ומערכות אחרות המושפעות מסטרס. בשל קלות ביצוע ההליך, העלות הנמוכה והשינויים הרבים בקנה המידה לעוצמת ומשך החשיפה ללחץ, ספרות נרחבת של מחקרים השתמשה במתח ריסון בעכברים וחולדות. כדוגמה אחת, מחקר זה מציג נתונים שפורסמו בעבר המראים את ההשפעה של מתח ריסון בעכברים טרנסגניים על רמות הקורטיקוסטרון בפלזמה ושחרור נוראדרנלין המושרה על ידי אופטוגנטיקה. מתח ריסון חריף העלה את רמות הקורטיקוסטרון בפלזמה, אך השפעה זו קהתה בעכברים בעקבות מתח ריסון חוזר. עם זאת, שחרור נוראדרנלין מגורה בגרעין המיטה של הסטריה טרמינליס גדל רק בקבוצת מתח ריסון חוזר. נתונים אלה מדגישים שיקולים חשובים של פרמטרים של ריסון במדדים תלויים. תיאורים נוספים של מתח ריסון בחולדות כלולים גם הם להשוואה. לבסוף, נדונה השפעת הפרמטרים של הריסון (למשל, אקוטי לעומת כרוני) ומאפייני נבדקי בעלי החיים (זן, מין, גיל).
מבוא
בשל החוויה האוניברסלית של לחץ, חקירות של מנגנוני התגובות המשתנות בעקבות חשיפה ללחץ היו תחום מחקר עקבי במשךכמה עשורים. מחקרים אלה החלו לנתח היבטים של לחץ שעשויים להועיל להגברת יכולת ההסתגלות וההיענות לגורמי לחץ חריפים מחוויות לחץ הגורמות לשינויים לא מסתגלים בתפקודים פיזיולוגיים והתנהגותיים, הנובעים לעתים קרובות מחשיפה ממושכת לגורמי לחץ חוזרים ו/או בלתי צפויים. רבות מהתגובות הללו לגורמי לחץ משפיעות על תפקוד המוח, על ציר ההיפותלמוס-יותרת המוח-יותרת הכליה (HPA), על הענפים הסימפתטיים והפאראסימפתטיים של מערכת העצבים האוטונומית ועל מערכת החיסון. חשיפה לגורמי לחץ יוזמת שחרור מוגבר של גורם משחרר קורטיקוטרופין (CRF) כדי להגביר את ההורמון האדרנוקורטיקוטרופי (ACTH) וההורמונים הגלוקוקורטיקואידים, כגון קורטיזול בפרימטים ויונקים רבים אחרים וקורטיקוסטרון במכרסמים2. בנוסף, אפינפרין ונוראדרנלין משתחררים ברחבי הפריפריה והמוח כחלק מתגובת מערכת העצבים הסימפתטית3. אותות כימיים אלה מקיימים אינטראקציה עם מספר מערכות פיזיולוגיות, כגון תפקוד חיסוני, חילוף חומרים, רבייה ותגובתיות עצבית4.
חוויות מלחיצות קשורות למספר עצום של מצבים, כולל עלייה בחרדה ודיכאון, שינויים בלמידה ובזיכרון, ליקויים בקבלת החלטות ובתפקוד ניהולי, ורגישות להפרעת שימוש בחומרים, בין היתר. כל אחת מההשפעות הללו תלויה הן בפרמטרים של גורם הלחץ והן במאפייני האדם שחווה לחץ4. טבעו של גורם הלחץ, כחריף או כרוני וכניתן לשליטה או בלתי צפוי, משנה באופן מהותי את התוצאות שנצפו. היבטים אלה של לחץ נראים עקביים בין חוויות אנושיות ומודלים של בעלי חיים. לפיכך, כדי לדגמן מתח במחקרים בבעלי חיים, יש להשתמש בשיקול דעת זהיר כדי לבחור פרמטרים של חשיפה ללחץ המתאימים למין, למין ולמצב.
למרות שמספר גורמי לחץ זמינים למחקרים עם מכרסמים (כולל גורמי לחץ פסיכו-סוציאליים כמו לחץ בידוד חברתי או תבוסה חברתית, גורמי לחץ תרופתיים כמו מתן קורטיזול או יוהימבין, גורמי לחץ פיזיים כמו זעזוע רגליים ואיפוק, וגורמי לחץ רב-מודאליים המשתלבים או מתחלפים בין מצבים), כתב היד הזה יתמקד בשימוש במתח ריסון בעכברים וחולדות. ניתן לבחור במתח ריסון על פני גורמי לחץ אחרים מכיוון שהוא קל לביצוע, זול, מתכוונן לגדלים שונים של מכרסמים, ניתן להרחבה לתקופות אקוטיות וארוכות טווח, ולעיתים נדירות גורם לנזק שלילילנבדק. למרות שכתב יד זה מתמקד בשינויים המתמשכים הנגרמים על ידי חשיפה ללחץ ריסון, חלק מהמחקרים משתמשים בריסון במכרסמים כדי לבחון מנגנונים והתנהגויות המתרחשות במהלך ריסון, כולל התנהגויות התמודדות אקטיביות המעורבות בבריחה מגורם הלחץ 6,7,8,9. מטרת כתב היד הזה היא לספק שיקולים מתודולוגיים להערכת ההשפעה של לחץ ריסון על עכברים או נבדקים של חולדות.
פרוטוקול
הניסויים והפרוטוקולים אושרו על ידי הוועדה המוסדית לטיפול ושימוש בבעלי חיים (IACUC) באוניברסיטת צפון קרוליינה בצ'אפל היל (עכברים) ואוניברסיטת פיירפילד (חולדות) ועוקבים אחר ההנחיות של NIH10.
1. מתח ריסון בעכברים
הערה: עכברים מציעים מספר יתרונות כאשר חוקרים את השפעות הלחץ על פיזיולוגיה ומערכות עצביות. עם השכיחות של קווי עכברים טרנסגניים, חקירות מכניסטיות של האינטראקציות בין גנים וחשיפות ללחץ אפשריות בקלות. בין אם משתמשים בעכברים טרנסגניים או פראיים, מומלץ לשקול את זן הרקע. בנוסף, בשל גודלם ודיורם החברתי, עכברים מציעים יתרון בניצול שטח על פני מינים אחרים.
- חשיפה למתח ריסון
- הקצה עכברים באופן אקראי לקבוצות בקרת כלוב ביתי, מתח ריסון חריף או קבוצות לחץ ריסון כרוניות.
- קבע את משך החשיפה ללחץ. עבור גורמי לחץ חריפים, השתמש בפגישה אחת הנמשכת 5 דקות עד 12 שעות כשאתה מוגבל במנגנון הריסון. עבור גורמי לחץ כרוניים, ודא שהפגישה תואמת את אורך גורם הלחץ החריף, אך חוזרת על עצמה מדי יום למשך 3 ימים קצרים ועד 21 ימים.
הערה: מכיוון שלעכברים תהיה גישה למזון ומים בתנאי ריסון, שקול אם גם לבעלי חיים בכלוב ביתי לא צריכה להיות גישה למזון ומים. - שנה צינורות חרוטיים של 50 מ"ל כדי להוסיף חורי אוורור.
- השתמש במקדחה חשמלית עם סיבית בגודל 1/8 אינץ' כדי לרווח באופן שווה חורים סביב כל צינור חרוטי כדי להבטיח זרימת אוויר בכל אזורי הצינור.
- מקם חורים אלה כדי לאפשר לעכבר גישה לאוויר ללא קשר לכיוון אליו פונה העכבר בצינור. ודא שלא יישארו קצוות חדים לאחר השינוי.
הערה: צינורות חרוטיים מותאמים אלה אמורים להיות יעילים עבור רוב העכברים הבוגרים (~20-40 גרם) אך עשויים שלא לרסן עכברים קטנים/צעירים או זנים גדולים יותר.
- בחדר בדיקות, נפרד ממגורים לבעלי חיים ובדיקות התנהגותיות, הנח את החיה שהוקצתה לריסון לתוך הצינור החרוטי המותאם כשהמכסה מחובר כדי להגביל את העכבר בצינור למשך הריסון המיועד.
הערה: הפרטים של עיצוב חדר הבדיקה יכולים להשתנות בהתאם לשטח הזמין במתקן; החדר יכול לכלול מכסי אדים וציוד מעבדה אחר ו/או שולחנות/ספסלים במעבדה או להיות חדר פרוצדורות ריק. עם זאת, ללא קשר להגדרת החדר, סביבת חדר הריסון צריכה להישאר עקבית על פני חשיפות חוזרות ונשנות של ריסון כדי למנוע שינויים הנגרמים בהקשר בתגובות הלחץ11. - הנח את צינור הריסון בצורה אופקית על משטח ישר. במידת הצורך, אבטח את הצינור עם סרט מעבדה או אגן פיפטה/מאגר ריאגנט כדי שלא יתגלגל עם העכבר בפנים.
הערה: בתנאי לחץ, עכברים מפיקים קולות קוליים. שקול אם תכנון המחקר דורש בידוד קול מנבדקים מרוסנים אחרים12. קורטיקוסטרון וסמנים אחרים של תגובות לחץ עוקבים אחר מקצבים צירקדיים. ככזה, יש לקחת בחשבון את תנאי התאורה וזמן הלחץ. בכל קבוצות הלחץ, איפוק צריך להתרחש בשעה קבועה של היום, רצוי מוקדם במחזור האור 13,14,15. במחקר המוצג כאן, עכברים היו מרוסנים במשך כ-3 שעות לאחר הדלקת אורות. - עקוב אחר כל בעל חיים במהלך לחץ ריסון לפחות כל 20 דקות. קבע חזותית אם החיה מציגה תגובות חריגות (נשימה איטית, חוסר תנועה). אם נצפה, הסר את העכבר מצינור הריסון, פנה לווטרינר והוציא את העכבר מהמחקר.
- החזר את העכבר לכלוב הביתי וספק גישה למזון ומים.
2. מתח איפוק אצל חולדות
הערה: כמכרסמים גדולים יותר, לחולדות יש יתרונות שיש לקחת בחשבון בעת חקירת השפעות הלחץ. כמו עכברים, לחולדות יש זנים שונים עם תגובות שונות לחשיפה ללחץ16,17. בנוסף, הגודל המוגדל של חולדות מקל על השימוש בחולדות באמצעים התנהגותיים מסוימים, למשל, מתן עצמי של תרופות.
- חשיפה למתח ריסון
- הקצה את החולדה באופן אקראי לקבוצת בקרת כלוב ביתי, מתח ריסון חריף או קבוצות לחץ ריסון כרוניות.
- קבע את משך החשיפה ללחץ. עבור גורמי לחץ חריפים, השתמש בפגישה אחת הנמשכת 5 דקות עד 12 שעות כשאתה מוגבל במנגנון הריסון. עבור גורמי לחץ כרוניים, ודא שהפגישה תואמת את אורך גורם הלחץ החריף, אך חוזרת על עצמה מדי יום למשך 3 ימים קצרים ועד 21 ימים.
הערה: מכיוון שלחולדות תהיה גישה למזון ומים במצב ריסון, שקול אם גם לבעלי חיים בכלוב ביתי לא צריכה להיות גישה למזון ומים. - עבור צינור ריסון זמין מסחרית, בצע את השלבים המתוארים להלן.
הערה: צינורות ריסון זמינים מסחרית לחולדות. למכשירים אלה יש מגוון עיצובים, כולל חוטי מתכת, מיכלים וצינורות פלסטיק/פרספקס עם אפשרויות מעוגלות ותחתית שטוחה. כל אפשרות פשוטה לשימוש.- הכנס את החולדה למכשיר, ולאחר מכן הוסף תקע המותאם לגודל הנושא, ונעל אותו במקומו. כאשר הוא מונח בצינור הריסון, ודא שהחולדה סגורה היטב כדי למנוע סיבובים ראש לזנב אך יכולה לנשום בקלות.
הערה: מכשירים אלה מיועדים לריסון חולדות ואינם זקוקים לשינוי לנשימה. מחקר זה משתמש ב-tailveiner restrap (טבלת חומרים), הכולל כוסות יניקה על פלטפורמה מתחת לצינור כדי לאבטח את המכשיר. יתרון נוסף של מכשיר זה הוא שהזנב נגיש מחוץ למכשיר לשליטה על הנבדק במהלך החדרה והוצאה משאיבת הדם של הצינור או וריד הזנב במהלך ריסון.
- הכנס את החולדה למכשיר, ולאחר מכן הוסף תקע המותאם לגודל הנושא, ונעל אותו במקומו. כאשר הוא מונח בצינור הריסון, ודא שהחולדה סגורה היטב כדי למנוע סיבובים ראש לזנב אך יכולה לנשום בקלות.
- בחדר בדיקה נפרד ממגורי בעלי חיים ובדיקות התנהגותיות, הנח אנימות שהוקצו לריסון לתוך צינור הריסון למשך הריסון המיועד. הנח את צינור הריסון בצורה אופקית על משטח ישר.
הערה: בתנאי לחץ, חולדות מייצרות גם קולות קוליים. שקול אם תכנון המחקר דורש בידוד רעש מנבדקים מרוסנים אחרים. - עקוב אחר כל בעל חיים במהלך לחץ ריסון לפחות כל 20 דקות. קבע חזותית אם החיה מציגה תגובות חריגות (נשימה איטית, חוסר תנועה). אם נצפה, הסר את החולדה מצינור הריסון, פנה לווטרינר והוצא את החולדה מהמחקר.
- החזירו את החולדה לכלוב הביתי וספקו גישה למזון ומים.
3. הערכות לחץ
- מדידת הפעלת HPA
- במידת הצורך, לאחר חשיפה למתח ריסון או הוצאה מהכלוב הביתי, ערפו במהירות את ראשי הנבדקים כדי לאסוף דם תא המטען לתוך צינורות הפרין.
- בודד פלזמה באמצעות צנטריפוגה ואחסן דגימות פלזמה בטמפרטורה של -80 מעלות צלזיוס. נתח קורטיקוסטרון בדם באמצעות ערכת בדיקת אימונוסורבנט מקושרת לאנזים (ELISA).
הערה: למרות שקורטיקוסטרון משמש לעתים קרובות כקריאה של חומרת החשיפה ללחץ, במיוחד מתח חריף, רמות הקורטיקוסטרון לא תמיד מתואמות עם שינויים התנהגותיים הנגרמים על ידי לחץ6. יתר על כן, תגובת ציר ה-HPA המווסתת את שחרור הקורטיקוסטרון מתרגלת לחשיפה חוזרת ונשנית לאותו גורם לחץ18. לחלופין, הורמון אדרנוקורטיקוטרופי (ACTH) עשוי להיות מדד אמין יותר לעוצמת גורם לחץ חריף4. הוא נשאר גבוה במשך כשעה לאחר הפסקת החשיפה לגורמי לחץ, אך מתח חמור וממושך (כ-> שעתיים) עלול לעייף את ייצורו.
- השפעות התנהגותיות
- במידת הצורך, לאחר חשיפה למתח ריסון או הוצאה מהכלוב הביתי, העריכו את הביצועים ההתנהגותיים של המכרסם עם המשימה ההתנהגותית המתאימה.
הערה: מידע נוסף לגבי השפעות האיפוק על מודלים התנהגותיים שונים ניתן למצוא בפרק הדיון.
- במידת הצורך, לאחר חשיפה למתח ריסון או הוצאה מהכלוב הביתי, העריכו את הביצועים ההתנהגותיים של המכרסם עם המשימה ההתנהגותית המתאימה.
- נוירוביולוגיה
- לחלופין או בנוסף, להעריך את התפקוד הנוירוביולוגי לאחר ריסון, חשיפה למתח או בקרה. מגוון רחב של בדיקות יכול לחקור את השפעות מתח הריסון על תאים, סינפטיים ומעגלים. בהתאם לבדיקה, השתל מכשיר מדידה in vivo או קצור רקמת מוח כדי לבצע את הניתוח שנבחר.
הערה: השפעות הלחץ על שינויים ספציפיים לסוג התא בסינתזת חלבונים ושינויים אפיגנטיים נסקרו ביסודיות על ידי מקיואן ועמיתיו1. שינויים גנטיים וחלבונים אלה גורמים לפלסטיות לשנות קשרים ומעגלים סינפטיים. על מנת לבצע מחקרים אלה, יש לקצור רקמת מוח לאחר חשיפה למתח ולבצע ניתוחים גנומיים, פרוטאומיים, פיזיולוגיה ex vivo ואחרים. לחלופין, להעריך שינויים נוירוביולוגיים באמצעות מדידות in vivo כגון מיקרודיאליזה, וולטמטריה מחזורית בסריקה מהירה (FSCV), פוטומטריית סיבים ואחרים. גישות אלה מתעדות שחרור נוירוכימי והפעלה עצבית, הן לאחר חשיפה למתח ריסון 2,19 והן כעת במהלך ריסון 8,9,20. ארגז הכלים להערכת המנגנונים הנוירוביולוגיים העומדים בבסיס ההשפעות של מתח ריסון מתרחב במהירות ומאפשר תובנות חדשות על מורכבות הלחץ.
- לחלופין או בנוסף, להעריך את התפקוד הנוירוביולוגי לאחר ריסון, חשיפה למתח או בקרה. מגוון רחב של בדיקות יכול לחקור את השפעות מתח הריסון על תאים, סינפטיים ומעגלים. בהתאם לבדיקה, השתל מכשיר מדידה in vivo או קצור רקמת מוח כדי לבצע את הניתוח שנבחר.
תוצאות
במחקר21 שפורסם בעבר, נעשה שימוש בהליכי מתח ריסון המתוארים בכתב יד זה כדי להעריך את ההשפעה של מתח ריסון על ויסות הקורטיזול והנוראדרנלין, הנופלים תחת האפשרויות הרחבות של שינויים בנוירוביולוגיה הנגרמים על ידי מתח המוזכר בפרוטוקול 3.3. במחקר זה, השתמשנו בפרוטוקול שתואר לעיל לריסון עכברים. פרטים נוספים שהם מעבר לתחום המיקוד של מאמר זה, למשל, הרציונל לאזור המוח, פרמטרים של גירוי אופטוגנטי או FSCV, ניתן למצוא בכתב היד המוזכר.
השתמשנו בעכברים טרנסגניים זכרים ונקבות (DBH:Cre+/-::Ai32+/-) המבטאים channelrhodopsin באופן סלקטיבי בתאי עצב נוראדרנרגיים ומדדנו שחרור נוראדרנלין מגורה בגרעין המיטה של הסטריה טרמינליס (BNST) עם ex vivo FSCV21. עכברים היו מרוסנים כמתואר בפרוטוקול 1 באופן חריף (שעתיים) ובאופן כרוני (שעתיים ביום למשך 5 ימים) או בשליטה בכלוב ביתי. לאחר החשיפה, נאסף דם מחלק מהנבדקים לניתוח קורטיקוסטרון, כמתואר בפרוטוקול 3.1. מיד לאחר עקה חריפה, עכברים הראו רמות קורטיקוסטרון גבוהות, אך התגובה הייתה קהה בעקבות עקה חוזרת ונשנית (ראו איור 1). עכברים נוספים שימשו להערכת ההשפעה של לחץ ריסון על שחרור נוראדרנלין. 24 שעות לאחר החשיפה הסופית למתח, רקמת המוח נקצרה ונחתכה במהירות כדי לתעד שחרור נוראדרנלין ב-BNST. מעניין שהריסון החריף לא השפיע על שחרור נוראדרנלין מגורה, אך חשיפה חוזרת ונשנית למתח גרמה לעלייה משמעותית בשחרור נוראדרנלין מגורה על פני פרמטרים של גירוי (ראה איור 2). תוצאות אלה מתכנסות למחקרים קודמים של השפעת לחץ ריסון על שחרור נוראדרנלין בחולדות באמצעות הגישות המתוארות בפרוטוקול 217,22.

איור 1: קורטיקוסטרון בפלזמה של בקרות כלוב ביתי (נאיבי) ובעקבות מתח ריסון חריף (יחיד) וכרוני (חוזר). לאחר מפגש יחיד של שעתיים של מתח ריסון חריף, רמות הקורטיקוסטרון בפלזמה היו גבוהות בהשוואה לנבדקים נאיביים וחוזרים. התוצאות מבוטאות כממוצע ± SEM. N = 5-6 עכברים לקבוצה. **p < 0.05, ***p < 0.005. נתון זה שונה באישור שמידט ואחרים.21. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
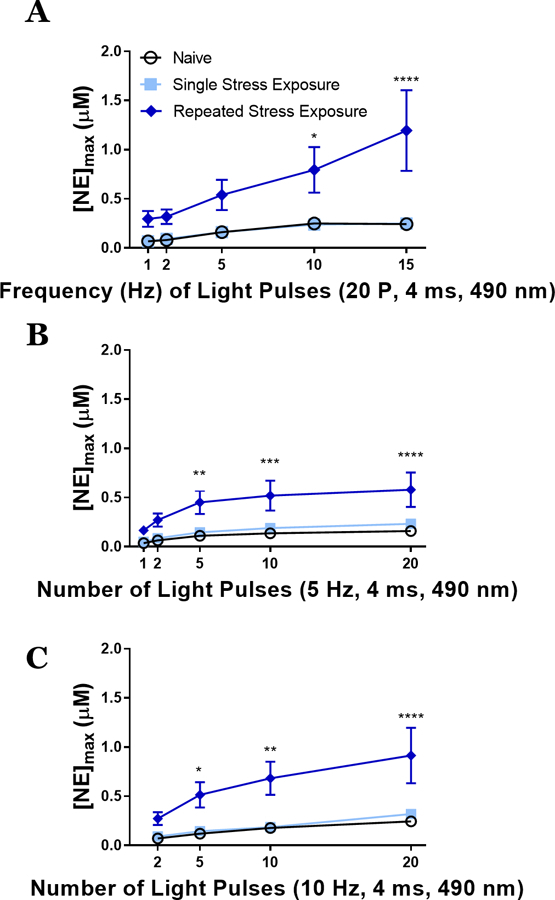
איור 2: שחרור נוראדרנלין מגורה אופטוגנטית מוגבר בעקבות מתח ריסון כרוני (חוזר). יום לאחר החשיפה הסופית למתח, בוצעה וולטמטריה מחזורית בסריקה מהירה ex vivo כדי למדוד שחרור נוראדרנלין מגורה אופטוגנטית בגרעין המיטה של הסטריה טרמינליס של עכברים. (A) וריאציות של תדר (Hz) של גירויים של 20 פולסים (20 P) שחררו יותר נוראדרנלין בקבוצת הלחץ החוזר. (ב, ג) שינויים במספר הפולסים (2-20) בתדר גירוי של 5 הרץ (B) או 10 הרץ (C) הצביעו על שחרור רב יותר של נוראדרנלין בקבוצת הלחץ החוזר. ממוצע ± SEM; n = 5-6 עכברים/קבוצה המספקים 7-8 פרוסות/קבוצה. *p < 0.05, **p < 0.05, ***p < 0.005 ו-****p < 0.0001. נתון זה שונה באישור שמידט ואחרים.21. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
דיון
כדי לחקור את ההשפעות של לחץ על תפקודים פיזיולוגיים, נוירוביולוגיים והתנהגותיים במודלים של מכרסמים, יש להשתמש בתנאים המייצרים לחץ למכרסמים. בין השיקולים הללו ניתן למנות את התנאים המייצרים תגובות לחץ בנבדק. ריסון הוא הליך מתוקף לייצור תגובות פיזיולוגיות והתנהגותיות במכרסמים התואמות את השפעות הלחץ בבני אדם. באמצעות מתודולוגיה הדומה לפרוטוקול זה, נעשה שימוש באיפוק כדי להעריך מספר תגובות מולקולריות, תאיות, אנדוקריניות ופיזיולוגיות הקשורות למודלים של הפרעות פסיכיאטריות, כולל חרדה, דיכאון, כאב והפרעת שימוש בחומרים 1,19. כאן, נתונים ממחקר אחד שפורסם מוצגים כדוגמה לריסון במכרסמים, אך השפעות הריסון חורגות מעבר לדוגמא הספציפית הזו למגוון עצום של אמצעים תלויים. ריסון עשוי להיבחר לשימוש כגורם לחץ מכיוון שהוא קל לביצוע בעכברים וחולדות, זול להקמה וניתן להתאמה כדי לגרום לרמות שונות של תגובות לחץ בהתאם לפרמטרים בהם נעשה שימוש.
בהשוואה לגישות אחרות המעוררות לחץ, לאיפוק יש כמה מגבלות שיש לקחת בחשבון במהלך תכנון המחקר 4,23. יש לציין כי מתח איפוק לא תמיד גורם לשינויים התנהגותיים שנצפו עם גורמי לחץ פיזיים אחרים, כמו זעזוע רגליים לסירוגין24. חוסר עקביות זה עשוי להיות תוצאה של היתרון של האיפוק שהוא יכול להתרחש במגוון סביבות, בעוד שזעזוע רגליים מוגבל יותר לתא בדיקה המצויד ברצפות רשת זעזועים. הקשרי לחץ משפיעים מאוד על ההשפעות המתקבלות11. בנוסף, כליאה בתוך צינור ריסון או מכשיר ריסון מסורתי היא חיסרון מכיוון שהיא מגבילה את הגישה לנבדק במהלך הריסון. התקני ריסון חדשים יותר פותחו, למשל, "REcording Signal TRansients ACCessible IN a Tube (RERESTINT)", כדי להתגבר על מגבלה זו ולאפשר קשירה לאיסוף נתונים נוירוביולוגיים במהלך מפגשי ריסון 8,9,20. גישה אחרת לטיפול במכשול זה משתמשת במתח קיבוע כטכניקה דומה לריסון - לעתים קרובות, קיבוע ואיפוק משמשים כמילים נרדפות אך עם הבדלים חשובים25. מתח קיבוע כרוך בהצמדת הידיים, הרגליים והראש של בעל החיים למשטח, בעוד שריסון כרוך בהצבה בתוך מכשיר מגביל. ככזה, מתח קיבוע מגביל את התנועה תוך מתן גישה לנבדק לאיסוף דם, נוזל מוחי שדרתי, תגובות אישונים או השפעות פיזיולוגיות אחרות שעשויות לעניין את חקר הלחץ. גורמי לחץ נוספים ששימשו להשראת לחץ במכרסמים כוללים מתח קור סביבתי, מתן חומרים פרמקולוגיים כמו קורטיקוסטרון או יוהימבין, חוויות רלוונטיות מבחינה אתולוגית של תבוסה חברתית או חשיפה לריח טורף, ולחץ רב-מודאלי כמו מתח כרוני בלתי צפוי (CUS). אופני לחץ חלופיים אלה נבחרים לשימוש בשל יתרונותיהם במידול היבטים ספציפיים של לחץ. לדוגמה, למרות שאיפוק הוא היבט של מודלים של CUS בעכברים וחולדות26, ההשפעות של CUS יכולות להיות שונות מאלו הנוצרות על ידי חשיפה מקבילה למתח ריסון כרוני 27,28. יכולת החיזוי של ריסון חוזר מפחיתה את התגובה לאפיזודות ריסון עתידיות, מה שמגביל את היעילות של מתח ריסון הומוטיפי. כחלופה, CUS ומודלים הטרוטיפיים אחרים של מתח מסובבים גורמי לחץ או הקשרים כדי למזער את ההתרגלות11,18. מודלים בלתי צפויים אלה של לחץ עשויים למדל טוב יותר היבטים של מצבים פסיכיאטריים אנושיים כדי לתמצת באופן מלא את אובדן השליטה והתוחלת. חיסרון נוסף של ריסון ששיטות לחץ אחרות טובות יותר בטיפול בו הוא התרומה החברתית לרגישות ללחץ וחציצה במתח 29,30,31. מכרסמים ובני אדם הם בעלי חיים חברתיים עם מערכות יחסים והיררכיות ספציפיות. למרות שמתח איפוק אינו משלב סוציאליזציה, גורמי לחץ פסיכו-סוציאליים כגון לחץ תבוסה חברתית מספקים גורם לחץ רלוונטי מבחינה אתולוגית למכרסמים 32,33,34.
במסגרת השימוש במתח ריסון, עוצמת הניהול והחזרתיות שלו הם פרמטר שניתן לתפעל5. כדי ליצור מתח ריסון חזק יותר, תכנון המחקר יכול לדרוש משך זמן ארוך יותר בהתקן הריסון. קצר של 5 דקות או עד 12 שעות הם פרמטרים אפשריים לאימוני ריסון חריפים או ממושכים,בהתאמה 35,36. לאחר קביעת משך החשיפה לריסון, החזרה על גורם הלחץ יכולה גם היא להוות גורם בגרימת רמות שונות של לחץ35,37. יש לציין כי מתח ריסון חוזר אינו אומר בהכרח עלייה בהשפעות שנצפו. לעתים קרובות מתח איפוק חוזר מרגיל או מפחית בדרך אחרת תגובות לחץ18. בנתונים המוצגים כאן, צפינו בהתרגלות עם תגובת הקורטיקוסטרון ללחץ ריסון חוזר, ובמקביל, מדדנו הבדלים בשחרור נוראדרנלין מגורה רק בקבוצת החשיפה החוזרת. לכן, יש לחקור בזהירות את ההשפעות של ריסון חוזר ונשנה לפני קביעת השפעות ההתרגלות35.
בנוסף, יש לקחת בחשבון את ההשלכות של תנאי הדיור המשמשים במחקרים המשתמשים במתח ריסון. אינטראקציה עם ספציפיים לחוצים משפיעה על תגובות לחץ במכרסמים 30,38,39. לפיכך, כדי לשמור על תגובות עקביות בין קבוצות הניסוי, הנבדקים צריכים להיות מאוחסנים בנפרד או כקבוצה כאשר כל חברי הכלוב חווים את אותו מצב לחץ37. באופן קריטי, החיסרון בגישה זו של בידוד חברתי של כל הנושאים הוא שדיור בידוד חברתי הוא גורם לחץ גםכן 40,41. עם זאת, ללא קשר לתנאי הדיור, חשיפה ללחץ צריכה להתרחש בבידוד, במידת האפשר, כדי למנוע חציצה חברתית של מתח המשפיעה על מדידות התוצאה30. יחד עם תנאי דיור אלה, יש לקחת בחשבון את תזמון החשיפה ללחץ ביחס למחזורי אור סביבתיים14,15. כפי שמצייניםכמה מחקרים 37, רמות הקורטיקוסטרואידים עוקבות אחר השעון הביולוגי, כך שמתן גורמי לחץ בזמנים שונים במחזור האור יכול לייצר השפעות לא עקביות. לכן, קביעה ושמירה על שעת התחלה אחידה לאיפוק היא חיונית. לדוגמה, מאמר אחד שבחן את השפעות הלחץ הגופני על הבקרה הצירקדית של קורטיקוסטרון מראה כי בעכברי ביקורת קורטיקוסטרון מגיע לשיא מאוחר במחזור האור, אך בעכברים לחוצים, קורטיקוסטרון נשאר גבוה ללא שיא יציב13. לאור ממצאים אלה, מומלץ ללחוץ על מכרסמים בשלב מוקדם במחזור האור כדי לייצר את ההשפעות הגדולות ביותר.
מעבר לפרמטרים של תנאי הריסון חשוב לקחת בחשבון גם את המאפיינים של הנבדק בעל החיים במחקרים המשתמשים בגורמי לחץ ריסון. לדוגמה, מחקרים רבים דיווחו על הבדלים בין המינים באמצעות מתח ריסון 12,35,37,42,43,44. הבנת המנגנונים העומדים בבסיס ההבדלים הללו ראויה לחקירה ועשויה להוביל לתוצאות טובות יותר לטיפולים שוויוניים כאשר אנשים חווים לחץ. אולי נשים וגברים חווים ומעבדים גורמי לחץ בצורה שונה, מה שמוביל לעלייה בחרדה ודיכאון אצל נשים44. לדוגמה, מתח איפוק מפחית את ביצועי הלמידה אצל גברים אך מגביר את ביצועי הלמידה אצל נשים45. מבחינה היסטורית, מחקרי מתח ריסון במכרסמים הגבילו את הנבדקים שלהם לזכרים, אך בהמשך עלינו לתכנן ניסויים שיכללו את שני המינים. נושא נוסף שיש לקחת בחשבון בעת תכנון ניסויים באמצעות גורמי לחץ ריסון (ואחרים) במיני עכברים או חולדות הוא הזן 46,47,48,49,50,51. השפעות מתח נצפו במספר פרדיגמות, כאשר חלק מהזנים מציגים תגובות מחמירות ללחץ ריסון. לבסוף, יש לקחת בחשבון את גיל הנבדק בעת שימוש במתח ריסון. מחשיפה טרום לידתית ללחץ על ידי ריסון אם בהריון ועד ריסון באוכלוסיות מבוגרות, ניתן להתאים מתח איפוק לכל נקודת זמן. הבדלים בתגובת הלחץ הוכחו לאורך תוחלת החיים 45,52,53,54,55,56. בנוסף לדרישה למכשירי ריסון שונים כדי להתאים לשינויים בגודל הגוף עם ההזדקנות, יש לקחת בחשבון חוויות מתח הקשורות לגיל בעת שימוש בגורמי לחץ מרסנים.
בחירת מדידת התוצאה המתאימה, בין אם מטלה התנהגותית המתוארת ב-3.2 או משתנה נוירוביולוגי המתואר ב-3.3, דורשת התייחסות. ראשית, חשיפה חריפה וקלה למתח הוכחה כמשפרת את הביצועים במשימות למידה מסוימות, אך חשיפה אינטנסיבית או כרונית למתח פוגעת בביצועים במשימות למידה וזיכרון57. שינויים אלה בביצועים הקוגניטיביים נחשבים מווסתים על ידי חוסר ויסות מעגלי בין קליפת המוח הקדם-מצחית, האמיגדלה וההיפוקמפוס. עם זאת, ההשפעות של לחץ ריסון על גמישות קוגניטיבית מעורבות יותר עם ממצאים לא עקביים המעכבים תמונה ברורה של כיצד פרמטרים מגוונים של ריסון משנים למידה הפוכה או שינוי סט58. בכל הנוגע להשפעות ההתנהגותיות של סמים, לחץ איפוק הוכח, כמו גורמי לחץ אחרים, כמגביר התנהגויות הקשורות להפרעת שימוש בחומרים במספר סוגי סמים59. עם זאת, השפעות אלה הן סלקטיביות במידה מסוימת בכך שמתח איפוק אינו מדווח כמניע חיפוש סמים במודלים של התניה אופרנטית של הישנות, אך כן מגביר את הלמידה האסוציאטיבית של השפעות סמים כפי שנמדד על ידי משימות העדפת מקום מותנות, כולל החזרת60. אי התאמה זו נחשבת להתרחש מכיוון שהתקני ריסון יוצרים הקשר נפרד מאשר תאי מיזוג אופרנטיים, בעוד שמתח הלם רגליים יכול להתרחש בסביבה האופרנטית. כדי להתגבר על מגבלה זו, שילוב חשיפה ללחץ עם רמזים שניתן להציג במהלך מפגשי ניהול עצמי אופרנטי הראה עלייה הנגרמת על ידי לחץ בנטילת סמים וחיפוש סמים61. ההשפעות של ריסון כרוני על התנהגויות הקשורות לסמים מאופיינות פחות טוב. בהתחשב במודלים של הפרעות רגשיות כמו חרדה ודיכאון, הן במודלים של בני אדם והן במודלים של בעלי חיים, חשיפה ללחץ מגבירה את מדדי החרדה. במכרסמים, הערכות מתח ריסון של חרדה כוללות תגובות תיגמוטקסיס במנגנון השדה הפתוח הנמדדות על ידי מעקב אחר התגובה התנועתית של החיה לאורך הקירות בזירה בהשוואה למרכז. בעלי חיים המפגינים התנהגויות דמויות חרדה בעקבות איפוק יבלו זמן רב יותר ליד הצדדים ויהיו להם פחות מעברי מרכז. גישה נוספת למדידת חרדה היא מבוך הפלוס המוגבה. משימה זו משתמשת במנגנון בצורת צלב המוגבה כ-3 רגל מעל הרצפה. שתי זרועות של המנגנון כוללות מחסומי קיר; לשתי זרועות יש צדדים פתוחים. בעלי חיים המפגינים התנהגויות דמויות חרדה יבלו זמן רב יותר בזרועות סגורות מאשר בזרועות פתוחות62,63. התנהגויות דמויות דיכאון מוערכות באמצעות משימת השחייה הכפויה שבה מכרסמים מונחים בגליל מים ונמדדים לתגובות מתקשות בהשוואה לתגובות צפות64. השאלה אם הפסקת המאבק להימלט באמת מייצגת התנהגות דמוית דיכאון הועמדה בסימן שאלה65, ובכל זאת המשימה הראתה תועלת כמסך לתרופות נוגדות דיכאון. ניתן להעריך התנהגויות דמויות דיכאון גם באמצעות הפחתה הנגרמת על ידי מתח בהעדפת סוכרוז66. שינויים אלה בצריכת נוזל מתוק נלקחים כהערכה של היבטי האנהדוניה של דיכאון קליני.
לסיכום, ריסון בעכברים וחולדות הוא הליך מתוקף ליצירת תגובות לחץ וחרדה במחקרים של פיזיולוגיה, גנטיקה, אימונולוגיה ומדעי המוח. בהשוואה לגישות אחרות המעוררות לחץ, איפוק הוא זול, קל לביצוע, שימושי למודל היבטים של הפרעות אנושיות כולל חרדה, דיכאון, הפרעת שימוש בחומרים והפרעת דחק פוסט טראומטית, וניתן להתאים אותו למגוון רחב של פרמטרים. מסיבות אלה, מתח איפוק ממשיך להיות שיטה שימושית לקביעת השפעת הלחץ במכרסמים.
גילויים
אין ניגודי אינטרסים לדווח.
תודות
אני מעריך את משוב העריכה שסיפקו הולי ראהורהו וסם שאפר.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 50 מ"ל מכסה בורג לשימוש כללי צינור חרוטי | גלובוס מדעי | 6288 | |
| אגן פיפטה חד פעמי | פישר סיינטיפיק | 13-681-500 | |
| ערכת ELISA למבחני סוכת קורטיקוסטרון | K014-H | ||
| צינור מסנן זנב | Braintree Scientific | RTV |
מקורות
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
הדפסות חוזרות והרשאות
