שימוש לרעה באלכוהול פוגע בחסינות המקרופאגים בנאדיות (AM) עקב דיכוי הנשימה המיטוכונדריאלית והביו-אנרגטיקה. לאחרונה הדגמנו כי חשיפה לאתנול (EtOH) מגבירה את התלות בגלוטמין לנשימה מיטוכונדריאלית ב-AMs. להלן שיטות לקביעת השימוש בגלוטמין לנשימה מיטוכונדריאלית ב-AMs שטופלו ב-EtOH באמצעות ביואנלייזר שטף חוץ-תאי.
מאמר שיטה
הערכת גלוטמין כמקור דלק למקרופאגים בנאדיות שנחשפו לאתנול כרוני באמצעות ביואנלייזר שטף חוץ-תאי
במאמר זה
סיכום
תקציר
מקרופאגים בנאדיות (AMs) הם קו ההגנה התאי הראשון בדרכי הנשימה התחתונות מפני פתוגנים. עם זאת, שימוש כרוני ומופרז באלכוהול פוגע ביכולתם של AMs לבצע פאגוציטים ולפנות פתוגנים מחלל הנאדיות, בין היתר באמצעות מטבוליזם דלק לא מווסת וביו-אנרגטיקה. עבודתנו הקודמת הראתה כי צריכת אתנול כרונית (EtOH) פוגעת בביו-אנרגטיקה של המיטוכונדריה ומעלה את רמות הלקטט ב-AMs. יתר על כן, לאחרונה הדגמנו כי EtOH מגביר את התלות בגלוטמין ואת הנשימה המקסימלית התלויה בגלוטמין תוך הפחתת הגמישות, מעבר מנשימה תלוית פירובט לעבר נשימה תלוית גלוטמין. גלוטמינוליזה הוא מסלול פיצוי חשוב לנשימה מיטוכונדריאלית כאשר פירובט משמש לייצור חומצה לקטית או כאשר מקורות דלק אחרים אינם מספיקים. באמצעות קו תאי AM של עכבר, תאי MH-S, שנחשפו ללא EtOH או EtOH (0.08%) במשך 72 שעות, קבענו את התלות של נשימה מיטוכונדריאלית וביו-אנרגטיקה בגלוטמין כמקור דלק באמצעות ביואנלייזר שטף חוץ-תאי. מדידות בזמן אמת נעשו בתגובה לביס-2-(5-פנילאצטמידו-1,3,4-תידיאזול-2-איל) אתיל סולפיד (BPTES), מעכב של גלוטמינאז 1, המונע המרה אנזימטית של גלוטמין לגלוטמט, ברכב מדיה או בתגובה לרכב בלבד, ולאחר מכן בדיקת לחץ מיטוכונדריאלי. הפרוטוקול שלב אחר שלב המסופק כאן מתאר את השיטות והחישובים שלנו לניתוח רמות ממוצעות של נשימה מיטוכונדריאלית בסיסית תלוית גלוטמין, נשימה מיטוכונדריאלית המקושרת ל- ATP, נשימה מיטוכונדריאלית מקסימלית ויכולת נשימה רזרביות במיטוכונדריה על פני שכפולים ביולוגיים וניסיוניים מרובים.
מבוא
הפרעת שימוש באלכוהול (AUD) משפיעה על יותר מ -28 מיליון אנשים בארצות הברית1. אנשים עם AUD נמצאים בסיכון גבוה פי 2-4 לפתח זיהומים בדרכי הנשימה 2,3, מה שמגדיל את הסיכון לתחלואה מוקדמת ולתמותה 3,4,5. שימוש לרעה באלכוהול מגביר את הרגישות לזיהומים בדרכי הנשימה, בין היתר באמצעות דיכוי תפקוד מערכת החיסון של הריאות. מקרופאגים בנאדיות (AMs) הם קו ההגנה התאי הראשון מפני פתוגנים בריאה התחתונה, שם הם מבצעים פגוציטים ומפנים חיידקים נשאפים. עם זאת, צריכת אלכוהול כרונית פוגעת ביכולתם של AMs לבלוע ולהרוג פתוגנים 6,7.
התפקודים החיסוניים של AMs, כגון phagocytosis, הם תהליכים תובעניים אנרגיה הדורשים מסלולים פעילים מטבולית הדרושים לייצור אדנוזין טריפוספט גבוה (ATP). זרחן חמצוני מיטוכונדריאלי הוא התהליך התאי היעיל ביותר לייצור ATP, אך חשיפה כרונית לאתנול (EtOH) מגבירה את העקה החמצונית שמקורה במיטוכונדריה, מה שעלול לגרום לתפקוד לקוי של המיטוכונדריה ב-AMs 8,9,10. נשימה מיטוכונדריאלית הנמדדת באמצעות קצב צריכת חמצן תאי (OCR) ניתנת לכימות באמצעות ביואנלייזר שטף חוץ-תאי בזמן אמת. פרופילי נשימה מיטוכונדריאלית שהוערכו בתגובה לאוליגומיצין (מעכב ATP סינתאז), קרבוניל ציאניד- p-trifluoromethoxyphenylhydrazone (FCCP, uncoupler פרוטונים) ורוטנון/אנטימיצין A (מעכבי R/A, קומפלקס מיטוכונדריאלי I ו-III, בהתאמה) משמשים לקביעת ביו-אנרגטיקה מיטוכונדריאלית. EtOH כרוני מפחית ביו-אנרגטיקה מיטוכונדריאלית ב-AMs, כפי שמעידה נשימה בסיסית מיטוכונדריאלית מופחתת, נשימה מקושרת ATP, נשימה מקסימלית ויכולת נשימה עודפת10.
לתאים יש רמות שונות של תלות במקורות דלק, כגון פירובט, גלוטמין או חומצות שומן, לייצור ATP. יש להם גם רמה של גמישות שבה הם יכולים להחליף את השימוש בדלק כדי לווסת ביו-אנרגטיקה תאית. גלוטמינוליזה היא נתיב מפתח לנשימה מיטוכונדריאלית, במיוחד כאשר פירובט מנותב לייצור חומצה לקטית או כאשר חומצות שומן אינן מספיקות. המחקר האחרון שלנו הראה כי חשיפה כרונית ל- EtOH מגבירה את התלות בגלוטמין ומפחיתה את גמישות AM לשימוש בגלוטמין ובמקורות דלק אחרים לנשימה מיטוכונדריאלית11. תוצאות אלה, יחד עם נתונים המראים כי טיפול בתאי MH-S שנחשפו ל- EtOH עם מעכב חמצון פירובט UK5099 לא שינה את הביו-אנרגטיקה המיטוכונדריאלית בהשוואה לתאי MH-S שנחשפו לבקרת מדיה וטופלו ב- UK5099, הציעו מעבר מנשימה תלוית פירובט לעבר נשימה תלוית גלוטמין בתאי MH-S EtOH. עם זאת, שינוי זה אינו מספיק כדי לענות על הדרישות הביו-אנרגטיות של AM11. במאמר זה אנו מתארים את השיטות להערכת גלוטמין כמקור דלק לנשימה מיטוכונדריאלית ב-AMs כרוניים שנחשפו ל-EtOH באמצעות ביואנלייזר שטף חוץ-תאי. פרוטוקול זה נוצר ומותאם לפורמט של 96 בארות (11.04 מ"מ2 שטח) ויש להתאים אותו לגדלים גדולים יותר של בארות תרבית תאים. התלות בגלוטמין עבור ביו-אנרגטיקה מיטוכונדריאלית נקבעת באמצעות bis-2-(5-phenylacetamido-1,3,4-thiadiazol-2-yl) אתיל סולפיד (BPTES, מעכב גלוטמינאז 1) כדי לעכב באופן סלקטיבי את ההמרה האנזימטית של גלוטמין לגלוטמט. הנתונים המוצגים במחקר זה הם שכפולים ביולוגיים נוספים עבור קבוצות הניסוי של בקרת מדיה ו- BPTES שטופלו של קו תאי AM של עכבר שנחשף ל- EtOH באופן כרוני, תאי MH-S, שפורסמו ב- Crotty et al.11.
פרוטוקול
1. חשיפה כרונית ל- EtOH במבחנה
- תאי MH-S בתרבית, קו תאי מקרופאג מכתשי עכבר, במדיה מלאה המכילה RPMI-1640 עם 10% נסיוב בקר עוברי, 1% פניצילין/סטרפטומיצין, 11.9 מילימטר נתרן ביקרבונט, 40 מ"ג/מ"ל גנטמיצין ו-50 מיקרומטר 2-מרקפטואתנול ב-37°C עם 5%CO2 באינקובטור לח.
- יש לטפל בתאי MH-S בתרבית עם או בלי EtOH (0.8 מ"ג/מ"ל או 0.08%) למשך 72 שעות, כאשר יש להחליף EtOH כל 24 שעות. לדגור על תאי MH-S שטופלו ב-EtOH ב-37°C עם 5%CO2 באינקובטור לח נפרד המכיל 0.08% EtOH במי האינקובטור.
2. ציפוי תאי MH-S להערכת גלוטמין כמקור דלק באמצעות ביואנלייזר שטף חוץ-תאי
- ודא שתאי MH-S לא מטופלים (Con) ותאי MH-S כרוניים שטופלו ב- EtOH גדלים לפחות למפגש של 50% (70%-90% מפגש הוא אידיאלי) בצלוחיות T-75 כדי לעבור לצלחת מיקרו-תרבית שטף חוץ-תאי של 96 בארות. הכינו מפת לוחות עבור 5-6 עותקים טכניים לכל שכפול ביולוגי של תנאי ניסוי Con ו-EtOH ובקרות מדיה עבור כל אחד מהם כדי להשוות מול זריקות BPTES (ארבע קבוצות סה"כ עבור n ביולוגי = 1).
- יש לשטוף תאים במי מלח במדיה או במי מלח חוצצים באמצעות פוספט.
- הוסף 6 מ"ל של מדיה המכילה סרום לצלוחית.
- מגרדים תאים עד שהם מנותקים ותחתית הצלחת ברורה. טריפסין אינו נחוץ להיפרדות תאי MH-S, אך עשוי לעזור בסוגי תאים אחרים.
- להפריד את התאים באמצעות פיפטה סרולוגית או פיפטה 1 מ"ל.
- מעבירים את התאים המרחפים לצינור חרוטי של 15 מ"ל וצנטריפוגות אותם ב 200 x גרם למשך 6 דקות.
- שאפו את הסופר-נאנט.
- הוסף 1 מ"ל של מדיה להשעות את התאים ביסודיות.
- מעבירים 10 μL לצינור מיקרוצנטריפוגה ומוסיפים 10 μL של טריפאן כחול. מערבבים היטב.
- העבירו 10 μL של תערובת התא/טריפאן כחול לצד אחד של המוציטומטר או מונה תאים.
- ספור את מספר התאים באמצעות מיקרוסקופ אור או מונה תאים.
- חשב את צפיפות התא כספירת תאים חיים ממוצעת למיליליטר.
- בצע חישובים עבור הדילולים הדרושים:
מספר הבארות הדרושות x 10000-15000 תאים = המספר הכולל של התאים הדרושים.
מספר הבארות הדרושות x 80 μL = הנפח הכולל של תאים מרחפים הדרושים. - החל 80 μL של תאים על הבארות הדרושות של צלחת microculture שטף חוץ תאי 96 בארות.
- השאירו את בארות הפינה נטולות תאים או מדיה לחלוטין. בארות אלה ישמשו למדידות רקע.
- יש לדגור על תאים באינקובטור לח של 37 מעלות צלזיוס עם 5% CO2 למשך הלילה כדי לאפשר לתאים להיצמד ולהתאזן בצלחת המיקרו-תרבית של השטף החוץ-תאי.
- טפל בתאי MH-S בלוח מיקרו-תרבית שטף חוץ-תאי בן 96 בארות במשך 72 שעות באמצעות שלב 1.
- לפחות 4 שעות ועד 24 שעות לפני ביצוע ניסוי השטף החוץ-תאי Bioanalyzer, לחות מחסנית שטף חוץ-תאי 96 בארות.
- הסירו את החלק העליון של השטף פאק החוץ תאי והניחו את החלק הנבדק של השטף פאק עם הפנים כלפי מעלה על הספסל. החל 200 μL של תמיסת כיול שטף חוץ-תאי על כל באר בחלק התחתון של מחסנית השטף החוץ-תאי.
- חבר את החלקים יחד ועטוף את מחסנית השטף פאק החוץ תאית בפרפילם. הניחו אותו באינקובטור לח 37 ° C שאינו CO2 או באמבט חרוזים 37 ° C.
- הפעל את המחשב המכיל את עיצוב הבדיקה ופתח את תוכנת הריצה/ניתוח המחוברת למכשיר הביואנלייזר של שטף חוץ-תאי כדי לאפשר לו להתחמם לפחות 4 שעות לפני ביצוע הניסוי.
3. שימוש בביואנלייזר שטף חוץ-תאי להערכת גלוטמין כמקור דלק לנשימה מיטוכונדריאלית בתאי MH-S
הערה: הסקירה הכללית של הליך זה מוצגת באיור 1.
- בדוק תאי MH-S בתרבית שטופלו ב- Con ו- EtOH תחת מיקרוסקופ אור וודא שהתאים בריאים ונצמדים לבארות בשכבה אחת. ודא כי התאים הם לפחות 70% confluent (90% confluency הוא אידיאלי) כדי לבצע את הבדיקה בצורה אמינה.
- הכינו את מדיום בסיס השטף החוץ תאי עם התוספים הבאים:
- Aliquot 35 מ"ל של מדיום בסיס שטף חוץ תאי לתוך צינור 50 מ"ל.
- הוסף 350 μL של נתרן פירובט 100 mM (ריכוז סופי של 1 mM), 350 μL D-גלוקוז (ריכוז סופי של 10 mM), ו 350 μL של GlutaMAX, שהוא יציב יותר במדף בהשוואה L-גלוטמין (ריכוז סופי של 2 mM).
הערה: ניתן להשתמש גם ב-L-גלוטמין טרי באותו ריכוז. - חממו את התמיסה ל-37°C וודאו שה-pH הוא 7.4 ±-0.05 ב-37°C.
- שאפו בעדינות את מצע הגידול מצלחת המיקרו-תרבית החוץ-תאית. השאירו כמה שפחות מדיה מבלי לשאוף תאים מלמטה. יש לשטוף פעם אחת עם מקסימום של 50 μL של מדיום הבסיס החוץ-תאי בתוספת שטף.
- הוסף 180 μL של שטף חוץ-תאי בתוספת תווך בסיס לכל באר ודגר על צלחת מיקרו-תרבית חוץ-תאית באינקובטור לחות ללא CO2 של 37 מעלות צלזיוס למשך 30 דקות עד שעה אחת כדי לאפשר איזון.
- להמיס ריאגנטים לבדיקת חמצון גלוטמין:
- לתוך צינור BPTES, להוסיף 700 μL של מדיום בסיס חוץ-תאי בתוספת שטף כדי ליצור פתרון מלאי 120 mM. פיפטה למעלה ולמטה 10 פעמים כדי להמיס כראוי את התרכובת.
אזהרה: BPTES גורם לגירוי בעור ובעיניים ועלול לגרום לגירוי נשימתי. יש ללבוש כפפות מגן, הגנה על העיניים והגנה על הפנים בעת הטיפול. יש להשליך את התכולה והמכלים למתקן מאושר לסילוק פסולת. - לתוך צינור האוליגומיצין, הוסף 630 μL של שטף חוץ-תאי בתוספת תווך בסיס כדי ליצור תמיסת מלאי של 100 מילימטר. פיפטה למעלה ולמטה 10 פעמים כדי להמיס כראוי את התרכובת.
- לתוך צינור FCCP, הוסף 720 μL של תווך בסיס חוץ-תאי בתוספת שטף כדי ליצור תמיסת מלאי של 100 מילימטר. פיפטה למעלה ולמטה 10 פעמים כדי להמיס כראוי את התרכובת.
אזהרה: FCCP מזיק בבליעה, גורם לכוויות חמורות בעור ולנזק לעיניים, עלול לגרום לתגובה אלרגית בעור ועלול לגרום להשפעות מזיקות ארוכות טווח על החיים הימיים. יש ללבוש כפפות מגן, ביגוד מגן, הגנה על העיניים והגנה על הפנים בעת הטיפול. יש להשליך את התכולה והמכלים למתקן מאושר לסילוק פסולת. - לתוך צינור R/A, הוסף 540 μL של מדיום בסיס חוץ-תאי בתוספת שטף כדי ליצור תמיסת מלאי של 50 מילימטר. פיפטה למעלה ולמטה 10 פעמים כדי להמיס כראוי את התרכובת.
אזהרה: רוטנון קטלני בבליעה או בשאיפה, גורם לגירוי בעור, גורם לגירוי חמור בעיניים, עלול לגרום לגירוי נשימתי ורעיל מאוד לחיים ימיים עם השפעות ארוכות טווח. יש ללבוש כפפות מגן, הגנה על העיניים, הגנה על הפנים והגנה נשימתית. יש להשליך את התכולה והמכלים למתקן מאושר לסילוק פסולת. אנטימיצין A קטלני בבליעה והוא רעיל מאוד לחיים ימיים, עם השפעות ארוכות טווח. יש להשליך את התכולה והמכלים למתקן מאושר לסילוק פסולת.
- לתוך צינור BPTES, להוסיף 700 μL של מדיום בסיס חוץ-תאי בתוספת שטף כדי ליצור פתרון מלאי 120 mM. פיפטה למעלה ולמטה 10 פעמים כדי להמיס כראוי את התרכובת.
- הכינו ריכוזי עבודה של ריאגנטים לבדיקת חמצון מצע ועקה מיטוכונדריאלית:
- עבור BPTES, ערבבו 1,500 μL של שטף חוץ-תאי בתוספת מדיום בסיס עם 500 μL של 120 mM BPTES כדי ליצור פתרון עבודה של 30 μM BPTES.
- עבור אוליגומיצין, יש לערבב 2,520 μL של שטף חוץ-תאי בתוספת מדיום בסיס עם 480 μL של אוליגומיצין 100 mM כדי ליצור פתרון עבודה אוליגומיצין של 16 mM.
- עבור FCCP, ערבבו 2,865 μL של שטף חוץ-תאי בתוספת תווך בסיס עם 135 μL של 100 mM FCCP כדי ליצור פתרון עבודה של 4.5 mM FCCP.
- עבור R/A, ערבבו 2,700 μL של שטף חוץ-תאי בתוספת מדיום בסיס עם 300 μL של 50 mM R/A כדי ליצור פתרון עבודה של 5 mM R/A.
- טען את היציאות של החלק העליון של מחסנית השטף החוץ-תאי עם הפריטים הבאים:
- טען את בארות בקרת הרקע והמדיה עם 20 μL של שטף חוץ-תאי בתוספת תווך בסיס ליציאה A, 22 μL של אוליגומיצין ליציאה B, 25 μL של FCCP ליציאה C ו-27 μL של R/A ליציאה D.
- טען את הבארות המכילות תאים עם 20 μL של בקרת מדיה או BPTES לתוך יציאה A (ריכוז סופי של 3 μM עבור BPTES), 22 μL של אוליגומיצין לתוך יציאה B (ריכוז סופי של 2 μM עבור oligomycin), 25 μL של FCCP לתוך יציאה C (ריכוז סופי של 0.5 μM עבור FCCP), ו 27 μL של R/A (ריכוז סופי של 0.5 μM עבור R/A) לתוך יציאה D.
- בצע את ניסוי השטף החוץ-תאי באמצעות תוכנת המחשב לתכנון וניתוח הבדיקות המחוברת למכשיר באמצעות אסטרטגיית התזמון וההזרקה הבאה:
- עבור ההזרקה עם יציאה A עבור BPTES, הגדר את מספר המדידות ל- 6. הגדר את זמן המיקס ל- 3 דקות, עם זמן המתנה של 0 דקות וזמן מדידה של 3 דקות.
- עבור הזריקה עם יציאה B עבור oligomycin, להגדיר את מספר המדידות על 3. הגדר את זמן המיקס ל- 3 דקות, עם זמן המתנה של 0 דקות וזמן מדידה של 3 דקות.
- עבור הזרקה עם יציאה C עבור FCCP, הגדר את מספר המדידות ל- 3. הגדר את זמן המיקס ל- 3 דקות, עם זמן המתנה של 6 דקות וזמן מדידה של 3 דקות.
- עבור הזרקה עם יציאה D עבור R/A, הגדר את מספר המדידות ל- 3. הגדר את זמן המיקס ל- 3 דקות, עם זמן המתנה של 0 דקות וזמן מדידה של 3 דקות.
- סקור את כל בארות הרקע, בקרת המדיה וקבוצת הניסויים. שמור והפעל את הבדיקה. ראשית, לטעון את השטף החוץ-תאי עם זריקות A-D. הכיול יתרחש עד שלוח התא יהיה מוכן לטעינה.
- הסר את לוחית התא מיד בסוף הבדיקה. שמור תוצאות לניתוח מאוחר יותר במכשיר אחר.
- בדוק אם התאים עדיין דבוקים באמצעות מיקרוסקופ אור. יש לשטוף 1x עם תאי מלח וליזה חוצצי פוספט עם חיץ ליזה מועדף של התא. יש לאחסן בטמפרטורה של -80°C או לבדוק מיד את ריכוז החלבון.
4. ניתוח תוצאות להערכת גלוטמין כמקור דלק לנשימה מיטוכונדריאלית בתאי MH-S
- חלץ חלבון מתאים בכל באר כדי לנרמל את נתוני קצב צריכת החמצן (OCR) לחלבון:
- חשב את הריכוז (ננוגרם/מיקרוליטר [ng/μL]) של חלבון לכל באר.
- חשב את ריכוז החלבון הממוצע (ng/μL) עבור כל לוח המיקרו-תרבית של שטף חוץ-תאי.
- חלק את ריכוז החלבון של כל באר בריכוז החלבון הממוצע של הצלחת כדי לקבל גורם נורמליזציה.
- החל את גורם הנורמליזציה על קובץ הנתונים המעניין באמצעות תוכנת המחשב לתכנון וניתוח המבחן.
- ודא שערכי זיהוי התווים האופטי (OCR) של כל בארות הרקע קרובים ל- 0.
- בטלו את הבחירה בכל באר תא שבה זיהוי תווים אופטי (OCR) הוא < 10 בנקודת ההתחלה. הנתונים לא יימחקו, אך בארות מסומנות יופיעו בקובץ הנתונים המיוצא.
- יצא את הנתונים מתוכנת המחשב לצורך תכנון וניתוח בדיקות לתוכנית גיליון אלקטרוני ממוחשבת.
- פתח את הקובץ בתוכנית הגיליון האלקטרוני של המחשב ומיין את כל הנתונים על-ידי הפחתת הערכים של זיהוי תווים אופטי (OCR). למחוק בארות רקע, בארות שלא נבחרו בעבר (ולא נמחקו), בארות עם כדאיות תאים נמוכה, בארות עם מפגש תאים נמוך, בארות ללא השלמת אסטרטגיית הזרקה מלאה, בארות עם קריאות ריכוז חלבון לא מדויקות, בארות עם OCR בסיסי < 10, וכל קריטריון אחר שנקבע מראש.
- מיין את כל הנתונים הנותרים לפי מדידה, לאחר מכן לפי קבוצה ולאחר מכן לפי זיהוי תווים אופטי (OCR).
- ממוצע טכני של כל N ביולוגי משתכפל באופן עצמאי על ידי מדידה. ודא שיש מינימום של 18 ערכים שונים (3 קו בסיס, 3 אחרי מדיה/BPTES, 3 אחרי אוליגומיצין, 3 אחרי FCCP ו-6 אחרי רוטנון/אנטימיצין A) לכל קבוצת ניסוי לכל N ביולוגי לאחר ממוצע ההעתקים הטכניים. עשו זאת עבור כל N ביולוגי בנפרד, כך שניתן יהיה לחשב את סטיית התקן או שגיאת התקן של הממוצע מאוחר יותר עבור נתונים מנותחים.
- העתק את כל הערכים הממוצעים לגיליון אלקטרוני חדש, כשהם מופרדים על-ידי קבוצת ניסויים.
- ממוצע ערכי זיהוי תווים אופטי (OCR) לפי אסטרטגיית הזרקה בכל קבוצת ניסוי.
- חישוב פרמטרים של ביואנרגטיקה מיטוכונדריאלית בהתבסס על צריכת חמצן:
- חישוב נשימה בסיסית:
- חישוב נשימה מיטוכונדריאלית בסיסית כדלקמן:
נשימה מיטוכונדריאלית בסיסית (pmol O2 נצרך) = ([מדידות OCR AVG #1, 2, 3 - מדידות OCR AVG #16, 17, 18] x [זמן #3 - זמן #1])
הערה: הנשימה הבסיסית צריכה להיות דומה בין קבוצת בקרת המדיה לקבוצות BPTES מכיוון שזה לפני הזרקת המעכב. - חישוב נשימה מיטוכונדריאלית בסיסית שאינה תלויה בגלוטמין באופן הבא:
נשימה מיטוכונדריאלית בסיסית שאינה תלויה בגלוטמין (pmol O2 נצרך) = ([מדידות OCR AVG #4, 5, 6, 7, 8, 9 - מדידות AVG OCR #16, 17, 18] x [זמן #9 - זמן #4])
הערה: נשימה מיטוכונדריאלית בסיסית שאינה תלויה בגלוטמין צריכה להיות נמוכה יותר מנשימה מיטוכונדריאלית בסיסית, אלא אם התאים אינם תלויים במידה רבה בגלוטמין. - חשב את הנשימה המיטוכונדריאלית הבסיסית התלויה בגלוטמין באופן הבא:
נשימה מיטוכונדריאלית בסיסית תלויה בגלוטמין (pmol O2 נצרך) = ([מדידות OCR AVG #1, 2, 3 - מדידות AVG OCR #4, 5, 6, 7, 8, 9] x [זמן #9 - זמן #4])
הערה: אין להפחית את הנשימה המיטוכונדריאלית הבסיסית הכוללת מהנשימה המיטוכונדריאלית הבסיסית, והיא לא צריכה להיות תלויה בגלוטמין, שכן אלה מחושבים בנקודות זמן שונות.
- חישוב נשימה מיטוכונדריאלית בסיסית כדלקמן:
- חישוב נשימה צמודת ATP באופן הבא:
- חשב את הנשימה הכוללת הקשורה ל- ATP במיטוכונדריה מכל הדלקים באופן הבא:
סה"כ נשימה מקושרת ATP מיטוכונדריאלית מכל הדלקים (pmol O2 נצרך) = ([מדידות OCR AVG #1, 2, 3 - מדידות OCR AVG #10, 11, 12] x [זמן #12 - זמן #10])
הערה: OCR הממוצע למדידות #10, 11 ו-12 צריך להיות דומה בין בקרת מדיה לקבוצות BPTES מכיוון שאוליגומיצין אמור לעכב מאוד ATP סינתאז, ועיכוב מסלול דלק אחד לא אמור לשנות את הנשימה הכוללת המקושרת ל-ATP. - חישוב נשימה מיטוכונדריאלית הקשורה ל-ATP שאינה תלויה בגלוטמין באופן הבא:
נשימה מיטוכונדריאלית הקשורה ל-ATP אינה תלויה בגלוטמין (pmol O2 נצרך) = ([מדידות OCR AVG #4, 5, 6, 7, 8, 9 - מדידות AVG OCR #10, 11, 12] x [זמן #12 - זמן #10])
הערה: נשימה מיטוכונדריאלית הקשורה ל-ATP שאינה תלויה בגלוטמין צריכה להיות נמוכה מנשימה מיטוכונדריאלית הקשורה ל-ATP, אלא אם התאים אינם תלויים במידה רבה בגלוטמין. - חישוב נשימה מיטוכונדריאלית הקשורה ל-ATP תלויה בגלוטמין באופן הבא:
נשימה מיטוכונדריאלית הקשורה ל-ATP תלויה בגלוטמין (pmol O2 נצרך) = נשימה מיטוכונדריאלית כוללת הקשורה ל-ATP מכל הדלקים - נשימה מיטוכונדריאלית הקשורה ל-ATP שאינה תלויה בגלוטמין
- חשב את הנשימה הכוללת הקשורה ל- ATP במיטוכונדריה מכל הדלקים באופן הבא:
- חישוב נשימה מקסימלית באופן הבא:
- חשב את הנשימה המיטוכונדריאלית המקסימלית הכוללת באופן הבא:
סה"כ נשימה מיטוכונדריאלית מקסימלית (pmol O2 נצרך) = ([מדידות AVG OCR #13, 14, 15 - מדידות AVG OCR #16, 17, 18] x [זמן #15 - זמן #13]) - חשב נשימה מיטוכונדריאלית מקסימלית שאינה תלויה בגלוטמין באופן הבא:
נשימה מיטוכונדריאלית מקסימלית שאינה תלויה בגלוטמין (pmol O2 נצרך) = ([מדידות OCR AVG #13, 14, 15 של קבוצות BPTES - מדידות OCR של AVG #16, 17, 18 של קבוצות BPTES] x [זמן #15 - #Time 13]) - חשב נשימה מיטוכונדריאלית מקסימלית התלויה בגלוטמין באופן הבא:
נשימה מיטוכונדריאלית מקסימלית התלויה בגלוטמין (pmol O2 נצרך) = נשימה מיטוכונדריאלית מקסימלית מלאה מכל הדלקים - נשימה מיטוכונדריאלית מקסימלית שאינה תלויה בגלוטמין
הערה: חישוב זה עשוי לשמש לקביעת תלות התא עבור קיבולת חילוף של גלוטמין בהשוואה לדלקים אחרים. ככל שהנשימה המיטוכונדריאלית המקסימלית גדולה יותר, כך גדלה התלות בגלוטמין, שיכולה להתבטא כקבוצות BPTES - קבוצות ביקורת כדי להראות אובדן בנשימה מיטוכונדריאלית מקסימלית או כאחוז מסך הנשימה.
- חשב את הנשימה המיטוכונדריאלית המקסימלית הכוללת באופן הבא:
- חישוב קיבולת נשימה עודפת כדלקמן:
- חשב את קיבולת הנשימה הרזרבית הכוללת באופן הבא:
קיבולת נשימה רזרביות כוללת (pmol O2 נצרך) = ([מדידות OCR AVG #13, 14, 15 - מדידות OCR AVG #1, 2, 3] x [זמן #15 - זמן #13]) - חישוב קיבולת נשימה עודפת שאינה תלויה בגלוטמין באופן הבא:
קיבולת נשימה רזרביים שאינה תלויה בגלוטמין (pmol O2 נצרך) = ([מדידות OCR של AVG #13, 14, 15 של קבוצות BPTES - מדידות OCR של AVG #1, 2, 3 של קבוצות BPTES] x [זמן #15 - זמן #13]) - חישוב קיבולת נשימה עודפת התלויה בגלוטמין באופן הבא:
קיבולת נשימה רזרביות תלויה בגלוטמין (pmol O2 נצרך) = קיבולת נשימה רזרביות כוללת מכל הדלקים - קיבולת נשימה רזרביות שאינה תלויה בגלוטמין
הערה: חישוב זה מייצג את הגמישות של תאים התלויים בגלוטמין ואם הם יכולים להשיג נשימה גדולה יותר ללא גלוטמין בעת הצורך.
- חשב את קיבולת הנשימה הרזרבית הכוללת באופן הבא:
- חישוב נשימה בסיסית:
- הפחת פקדי מדיה על ידי קבוצות מעכבות ונרמל pmol O2 נצרך ביחס לקבוצת הביקורת אם תרצה בכך.
- צור גרפים של פרופילים ביו-אנרגטיים של OCR (pmol O2/min), נשימה בסיסית (pmol O2), נשימה מקושרת ATP (pmol O2), נשימה מרבית (pmol O2) וקיבולת נשימה רזרביות (pmol O2) התלויה בגלוטמין.
- תאר ערכי נקודות קצה ביו-אנרגטיות מיטוכונדריאליות בתרשימי עמודות או ביטוי כאמצעי לקבוצות המעכבים ביחס לקבוצות הבקרה של המדיה. אם כל N ביולוגי מחושב בנפרד, אז לחשב את סטיית התקן או שגיאת התקן של הממוצע עבור נתונים מנותחים על פני כל NS ביולוגי.
5. ניתוח סטטיסטי
- בצע את כל הניתוחים הסטטיסטיים באמצעות תוכנת ניתוח נתונים מתאימה.
- עבור נקודות ליניאריות של פרופילים ביואנרגטיים של OCR, בצע ANOVA דו-כיווני ואחריו ניתוחי פוסט-הוק של Tukey כדי להשוות נתונים מארבע קבוצות ניסוי אלה עם שני גורמים (אסטרטגיית טיפול והזרקה): Con + media, Con + BPTES, EtOH + media ו- EtOH + BPTES.
- עבור גרפים עמודות של נשימה בסיסית, נשימה מקושרת ATP, נשימה מקסימלית ויכולת נשימה עודפת התלויה בגלוטמין, בצע ניתוחי מבחן t של התלמידים כדי להשוות נתונים משתי קבוצות ניסוי, Con + BPTES, ו- EtOH + BPTES.
- הצגת נתונים כאמצעי ± שגיאת תקן של הממוצע (SEM). ניקח בחשבון את p < 0.05 מובהק סטטיסטית.
תוצאות
חשיפה כרונית ל-EtOH מפחיתה את התלות בגלוטמין בתאי MH-S.
גלוטמינוליזה הוא מסלול קריטי לנשימה מיטוכונדריאלית, ותומך בגלוטמין כמקור דלק חשוב לביו-אנרגטיקה תאית. כדי לקבוע אם חשיפה כרונית ל-EtOH משנה את התלות של תאי MH-S בגלוטמין כמקור דלק לנשימה מיטוכונדריאלית, תאי MH-S טופלו ללא בקרת EtOH (Con) או EtOH, ו-OCR נמדד לאורך זמן בתגובה לזריקות סדרתיות של ריאגנטים הקשורים לנשימה מיטוכונדריאלית. פרופילים ביואנרגטיים של OCR בתגובה להזרקות סדרתיות של אוליגומיצין (מעכב ATP סינתאז), FCCP (מפריד פרוטונים) ו-R/A (מעכבי קומפלקס מיטוכונדריאלי I וקומפלקס III, בהתאמה) משמשים לחישוב פרמטרים אחרים של ביו-אנרגטיקה מיטוכונדריאלית, כגון נשימה מקושרת ATP, נשימה מקסימלית ויכולת נשימה רזרבי. כל הנתונים המוצגים הם שכפולים ביולוגיים נוספים של Con + media, Con + BPTES, ו- EtOH + media, EtOH + BPTES MH-S קבוצות ניסוי תאים שפורסמו ב- Crotty et al.11. כפי שניתן לראות באיור 2A, אוליגומיצין הפחית OCR עקב עיכוב של קומפלקס V, FCCP הגדיל את OCR עקב ביטול צימוד מיטוכונדריאלי של פוטנציאל הממברנה ודורATP 12 תלוי מיטוכונדריה, ו-R/A כיבה ביעילות OCR תלוי מיטוכונדריה. פרופילים אלה של תגובות ביו-אנרגטיות של OCR לזריקות סדרתיות עולים בקנה אחד עם המדריך למשתמש להערכת עקה מיטוכונדריאלית באמצעות ביואנלייזרשטף חוץ-תאי 13,14.
לאחר שנמדד OCR בסיסי בתאי MH-S שטופלו ב-Con וב-EtOH, הועמסה הזרקה של בקרת מדיה או BPTES, מעכב גלוטמינאז 1. Con + media לעומת Con + BPTES תאי MH-S ותאי EtOH + מדיה לעומת EtOH + BPTES תאי MH-S לא הדגימו הבדלים בפרופילים ביו-אנרגטיים של זיהוי תווים אופטי (OCR) (איור 2A). תאי EtOH + BPTES MH-S הראו ירידה בנשימה הבסיסית התלויה בגלוטמין בהשוואה ל- Con + BPTES (מדידה #4 בהשוואה למדידה #3 באיור 2A ובאיור 2B), דבר המצביע על כך ש- EtOH מפחית את חמצון הגלוטמין הבסיסי של תאי MH-S התורם לנשימה מיטוכונדריאלית. תאי EtOH + BPTES MH-S הציגו אובדן של נשימה מיטוכונדריאלית הקשורה לגלוטמין-תלויי-ATP בהשוואה ל-Con + BPTES (איור 2C). אף על פי שתאי EtOH + BPTES MH-S הדגימו אובדן קהה בנשימה מקסימלית תלוית גלוטמין בהשוואה ל-Con + BPTES (איור 2D), תאי MH-S של EtOH + BPTES הראו ירידה ביכולת הנשימה הרזרבית התלויה בגלוטמין בהשוואה ל-Con + BPTES (איור 2E). תוצאות אלה מצביעות על כך שלתאי EtOH MH-S יש את היכולת להיות תלויים יותר בגלוטמין לנשימה, כמו בעת סטרס עם FCCP, אך ייתכן שהם לא יוכלו לעשות זאת עקב עלייה בביקוש לגלוטמין העולה על הירידה בזמינות הביולוגית של גלוטמין.
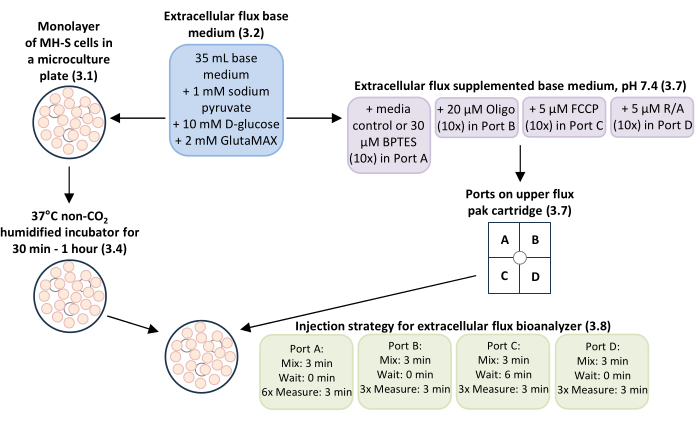
איור 1: סקירה כללית של תהליך העבודה למדידת נשימה מיטוכונדריאלית תלוית גלוטמין וביו-אנרגטיקה בתאי MH-S, קו תאי מקרופאגים בנאדיות עכבר. חד-שכבות של תאי MH-S שגודלו בתרבית בארות צלחות מיקרו-תרבית של שטף חוץ-תאי (שלב 3.1) הודגרו עם תווך בסיס שטף חוץ-תאי עם תוספים שנוספו (שלב 3.2) ב-37 מעלות צלזיוס באינקובטור לח שאינו CO2 למשך 30 דקות-1 שעות (שלב 3.4). תווך בסיס השטף החוץ תאי בתוספת תוספים (שלב 3.2) שימש לבקרת מדיה ולדילול ריכוזי העבודה של מעכב חמצון הגלוטמין BPTES לריכוז סופי של 3 מיקרומטר, אוליגומיצין מעכב V קומפלקס מיטוכונדריאלי לריכוז סופי של 0.5 מיקרומטר, קרבוניל ציאניד-p-טריפלואורומתוקסיפניל-הידרזון מיטוכונדריאלי עד ריכוז סופי של 0.5 מיקרומטר, ותרכובת מיטוכונדריאלית I ומעכבי קומפלקס III רוטנון/אנטימיצין A (R/A) עד 0.5 מיקרומטר ריכוז סופי לטעינת יציאות A-D במחסנית השטף החוץ-תאי העליונה (שלב 3.7). אסטרטגיית ההזרקה לערבוב, המתנה ומדידת זמני ריצת הניסוי באמצעות ביואנלייזר שטף חוץ-תאי הייתה: זמן ערבוב של 3 דקות, זמן המתנה של 0 דקות ו-6 מדידות של זמן מדידה של 3 דקות עבור פורט A (בקרת מדיה או BPTES); זמן ערבוב של 3 דקות, זמן המתנה של 0 דקות ו-3 מדידות של זמן מדידה של 3 דקות עבור יציאה B (אוליגו); זמן ערבוב של 3 דקות, זמן המתנה של 6 דקות ושלוש מדידות של זמן מדידה של 3 דקות עבור יציאה C (FCCP); וזמן ערבוב של 3 דקות, זמן המתנה של 0 דקות ושלוש מדידות של זמן מדידה של 3 דקות עבור Port D (R/A). אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
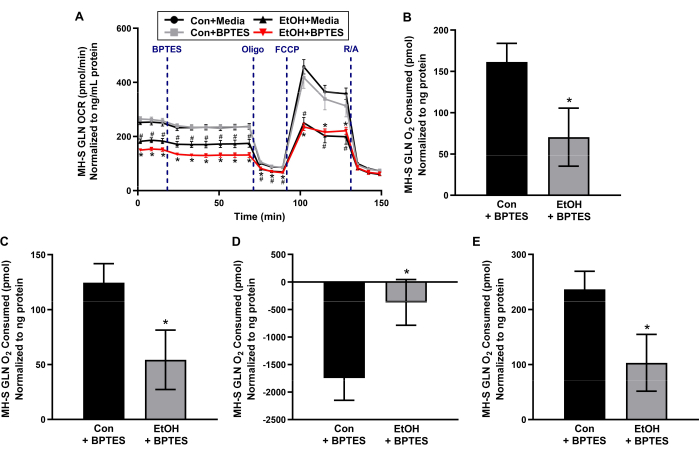
איור 2: אתנול כרוני (EtOH) מפחית נשימה מיטוכונדריאלית תלוית גלוטמין בתאי MH-S, קו תאי מקרופאגים בנאדיות עכבר. תאי MH-S לא טופלו (Con) או טופלו ב-EtOH (0.08%, 72 שעות), וקצב צריכת החמצן (OCR) לאורך זמן נמדד באמצעות ביואנלייזר שטף חוץ-תאי לפני ואחרי הזרקה עם בקרת מדיה או מעכב חמצון גלוטמין (GLN) (3 מיקרומטר של BPTES), ואחריו הזרקות סדרתיות של מעכב V קומפלקס מיטוכונדריאלי (0.5 מיקרומטר של אוליגומיצין, אוליגו), uncoupler מיטוכונדריאלי (0.5 מיקרומטר של קרבוניל ציאניד-p-trifluoromethoxyphenylhydrazone, FCCP), קומפלקס מיטוכונדריאלי I ומעכבי קומפלקס III (0.5 מיקרומטר של רוטנון/0.5 מיקרומטר של אנטימיצין A, R/A). (A) פרופילים ביו-אנרגטיים של OCR שימשו לחישוב נשימה בסיסית תלוית גלוטמין, (B) נשימה מקושרת ATP, (D) נשימה מקסימלית ו-(E) יכולת נשימה רזרבי. נקודות ליניאריות מייצגות אמצעים ± SEM (n = 4, #p < 0.05 לעומת Con + media ו- *p < 0.05 לעומת Con + BPTES, ANOVA חד-כיווני עם פוסט הוק של Tukey). עמודות מייצגות פירושו ± SEM (n = 4, *p < 0.05 לעומת Con + BPTES, מבחן t של סטודנט). הנתונים המוצגים הם שכפולים ביולוגיים נוספים עבור קבוצות הניסוי של בקרת מדיה ו- BPTES של תאי MH-S לא מטופלים וכרוניים שנחשפו ל- EtOH, אשר פורסמו ב- Crotty et al.11. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
דיון
הנתונים המוצגים כאן הם שכפולים ביולוגיים נוספים עבור תאי MH-S לא מטופלים וכרוניים שנחשפו ל- EtOH ומטופלים בבקרת מדיה או BPTES, המתפרסמים ב- Crotty et al.11. הפרוטוקול המתואר משמש להערכת התלות של תאי MH-S שנחשפו ל- EtOH בגלוטמין כמקור דלק לנשימה מיטוכונדריאלית וביו-אנרגטיקה באמצעות ביואנלייזר שטף חוץ-תאי. ישנם מספר שלבים קריטיים בפרוטוקול. ראשית, היווצרות תאי MH-S ומפגש הם חשובים. תאי MH-S מגודלים בתחילה בתרבית בבארות מיקרו-תרבית בשטף חוץ-תאי במפגש נמוך, ומשתמשים בהם כאשר התאים נמצאים בשכבה חד-שכבתית במפגש סופי של 90%. מכיוון שחשיפת EtOH של תאי MH-S הייתה במשך 72 שעות, המפגש הסופי של 90% הושג לפני הריצה הניסיונית על ביואנלייזר שטף חוץ-תאי. זה עולה בקנה אחד עם דיווחים אחרים על היווצרות חד-שכבתית של תאים ומפגש של 90%-100% לפני ביצוע ניסויים אלה 15,16,17. שנית, הנורמליזציה של ערכי הנשימה המיטוכונדריאלית לחלבון בכל דגימה היא קריטית. מחקרים מסוימים מנרמלים ביו-אנרגטיקה מיטוכונדריאלית למספר תא 18,19,20. עם זאת, אסטרטגיית ההזרקה הסדרתית בבדיקה זו נועדה להפעיל לחץ רציף על המיטוכונדריה. בתאים המסתמכים בעיקר על זרחן חמצוני, כגון AMs, הדבר עלול להוביל למוות תאי במהלך הניסוי על הביואנלייזר החוץ-תאי של שטף. לכן, מספרי התאים עשויים שלא להיות עקביים מתחילת הניסוי ועד סוף ריצת הניסוי, ונורמליזציה של ערכי הנשימה המיטוכונדריאלית לחלבון היא אופטימלית21,22. מקדם נורמליזציה של חלבונים באמצעות חלבון ממוצע בכל הבארות מוצע כאן על מנת לדווח על פרופילי OCR ספציפיים לתאים מדויקים יותר. שלישית, ניתוח התוצאות על פני שכפולים ביולוגיים הוא המפתח. לעיתים, תמונות מייצגות של פרופילים ביו-אנרגטיים מיטוכונדריאליים מוצגות22,23 במקום נשימה מיטוכונדריאלית ממוצעת על פני מספר העתקים ביולוגיים 10,11,24. עם זאת, תמונות מייצגות אלה אינן מספקות תמונה מלאה של השונות בין הניסויים. על ידי חישוב כל שכפול ביולוגי בנפרד, שגיאת התקן של הממוצע יכולה להראות את השונות של ערכי הנשימה המיטוכונדריאלית הממוצעת על פני כל העותקים הביולוגיים המשוכפלים ולשמש לחישוב הבדלים סטטיסטיים בין פרופילים ביו-אנרגטיים מיטוכונדריאליים.
לפני הרצת הבדיקה על ביואנלייזר שטף חוץ-תאי, היה צורך לקבוע את צפיפות התאים האופטימלית של תאי MH-S לתרבית בצלחת המיקרו-תרבית של שטף חוץ-תאי כדי להשיג שכבה אחידה של תאים בכל באר. מאחר שהיה צורך לקבוע גם את הריכוזים המתאימים של אוליגו ו-FCCP לתאי MH-S, בוצעו בדיקות של צפיפויות תאי MH-S שונות עם דילול סדרתי של אוליגו ו-FCCP21,25. תרבית ראשונית של 10,000-15,000 תאי MH-S הביאה לחד-שכבה של תאים במפגש של 90% לאחר 72 שעות של חשיפה עם ובלי EtOH10. בהתבסס על ניסויי אופטימיזציה אלה, 2 מיקרומטר של אוליגו ו-0.5 מיקרומטר של FCCP נקבעו כריכוזים המינימליים של ריאגנטים אלה שגרמו לשינויים בנשימה המיטוכונדריאלית10.
מדדים בזמן אמת של נשימה מיטוכונדריאלית בתחילת המחקר ולאחר טיפול ב-BPTES, מעכב של גלוטמינאז 1, המונע המרה אנזימטית של גלוטמין לגלוטמט, משמש לקביעת תלות בגלוטמין לנשימה בסיסית בתאי MH-S החשופים ל-Con ול-EtOH. מגבלה של הנתונים המוצגים במחקר זה היא שתפקידן של חומצות שומן קצרות ובינוניות שרשרת כמקורות דלק לנשימה מיטוכונדריאלית ולביו-אנרגטיקה, בנוסף לגלוטמין בתאי MH-S שנחשפו ל-EtOH, לא נחקרו. תוצאות המחקר הקודם של Crotty et al.11 הצביעו על כך שתאי EtOH MH-S הציגו מעבר מנשימה תלוית פירובט לנשימה תלוית גלוטמין ללא פיצוי מלא על אובדן הנשימה המיטוכונדריאלית הכוללת. יתר על כן, על ידי ביצוע אותו ניסוי עם הזרקה משולבת של UK5099 (מעכב חמצון פירובט) ואטומוקסיר (מעכב חמצון חומצות שומן ארוכות שרשרת), תרומתו של גלוטמין בהיעדר פירובט וחומצות שומן כמקורות דלק לנשימה מיטוכונדריאלית יכולה להיקבע בתאי MH-S שנחשפו ל- EtOH.
נשימה מיטוכונדריאלית נמדדה באמצעות אלקטרודת קלארק במשך כמעט שבעים שנה26, ויש גם בדיקות פלואורסצנטיות מבוססות צלחת למדידת נשימה מיטוכונדריאלית27. עם זאת, שיטות אלה גוזלות זמן רב יותר באופן משמעותי ו / או חסרות את הרגישות של מדידות שניתן להשיג עם ביואנלייזר שטף חוץ-תאי. היתרון בשימוש בביואנלייזר שטף חוץ-תאי להערכת גלוטמין כמקור דלק לנשימה מיטוכונדריאלית ולביו-אנרגטיקה הוא שניתן לערוך ניסויים עם מספר שכפולים ביולוגיים בו זמנית. בנוסף, השטף החוץ-תאי מאפשר גמישות להתנסות במיטוכונדריה מבודדים או בתאים שלמים. עבור תאים שאין בהם ריכוז גבוה של מיטוכונדריה, כגון תאי שריר חלק בעורק ריאתי, בידוד מספיק מיטוכונדריה מדגימות מוגבלות הוא מאתגר. באמצעות ביואנלייזר שטף חוץ-תאי, ניתן למדוד נשימה מיטוכונדריאלית בתאי שריר חלק תקינים בעורק הריאה28 או בעכבר ראשוניAMs 10,11. הפרוטוקול ששימש במחקר זה יכול לשמש להערכת גלוטמין כמקור דלק לנשימה מיטוכונדריאלית וביו-אנרגטיקה של דגימות אחרות בגודל דגימה מוגבל, כגון AMs אנושיים ראשוניים. הראינו בעבר כי עקה חמצונית הנגרמת על ידי EtOH והפרעות במיטוכונדריה בתאי MH-S מציגות פרופיל דומה של חוסר ויסות מיטוכונדריאלי ב- AMs ראשוניים של עכברים וב- AMsאנושיים 6,7,11,28,29,30. באופן קולקטיבי, מחקרים תומכים בשימוש בשיטה זו של הערכת גלוטמין כמקור דלק לנשימה מיטוכונדריאלית וביו-אנרגטיקה ב-AMs בתנאים פתולוגיים המאופיינים בעקה חמצונית שמקורה במיטוכונדריה.
גילויים
לכל המחברים אין ניגודי עניינים כספיים רלוונטיים לדווח עליהם.
תודות
אנו מכירים בתרומתה של שרה ס. צ'אנג, BS, לתרבית תאים ראשונית והכנת תאי MH-S לניסויים. עבודה זו נתמכה על ידי NIAAA R01-AA026086 ל-SMY (ORCID: 0000-0001-9309-0233), NIAAA F31-F31AA029938 ל-KMC ו-NIGMS T32-GM008602 לרנדי הול, המחלקה לפרמקולוגיה וביולוגיה כימית, אוניברסיטת אמורי. תוכן דו"ח זה אינו מייצג את העמדות של המחלקה לענייני חיילים משוחררים או של ממשלת ארה"ב.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| צינור חרוטי 15 מ"ל | VWR אינטרנשיונל, בע"מ | 21008-670 | משמש להכנת ריכוזי מלאי של ריאגנטים הקשורים למיטוכונדריה. |
| 2-מרקפטואתנול | סיגמא אולדריץ' ושות' | M6250 | משמש לטיפוח תאי MH-S. |
| מגרד תאים | Dot Scientific, Inc. | 70-1180 | משמש לגירוד תאי MH-S מצלוחיות T-75. |
| מכשיר רוזנת 3 FL: מונה תאים | של חברת פישר סיינטיפיק | AMQAF2000 | משמש לספירת מספר תאי MH-S לצלחת לניסויים. |
| D-גלוקוז | סיגמא אולדריץ' ושות' | G8270 | משמש למדיום הבסיס של השטף החוץ-תאי. |
| חברת אתנול | פישר סיינטיפיק | 4355720 | טיפול ניסיוני בתאי MH-S. |
| סרום בקר עוברי | מעבדות מחקר Sciencell | 500 | משמש לתרבית תאי MH-S. |
| Gentamicin | Sigma Aldrich Co. | G1397 | משמש לטיפוח תאי MH-S. |
| GlutaMAX | Thermo Fisher Scientific | 35050061 | משמש למדיום הבסיס של שטף חוץ-תאי. |
| GraphPad Prism 10.2.3 | תוכנת GraphPad | N/A | תוכנה לניתוח סטטיסטי. ניתן להורדה לאחר הרכישה בשעה https://www.graphpad.com/features. |
| תאי MH-S | אוסף תרבית מסוג אמריקאי | CRL-2019 | קו תאי מקרופאגים מכתשית עכבר. |
| צינור מיקרוצנטריפוגה | ארה"ב סיינטיפיק בע"מ | 4036-3212 | משמש להכנת ריכוזי עבודה של ריאגנטים הקשורים למיטוכונדריה. |
| Microsoft 365 Excel: תוכנת גיליונות אלקטרוניים ממוחשבת | של Microsoft | N/A | תוכנה לארגון נתונים וחישובי ביו-אנרגטיקה מיטוכונדריאלית. ניתן להורדה לאחר הרכישה בשעה https://www.microsoft.com/en-us/microsoft-365/excel. |
| פניצילין/סטרפטומיצין | חברת פישר סיינטיפיק | 15140122 | משמש לתרבית תאי MH-S. |
| פוספט חוצץ מלח | VWR International, Inc. | 45000-446 | משמש לשטיפת תאי MH-S. |
| RPMI-1640 | VWR אינטרנשיונל, בע"מ | 45000-396 | משמש לתרבית תאי MH-S. |
| תוכנת Seahorse Wave Pro: תוכנת מחשב לתכנון וניתוח בדיקות | Agilent Technologies, Inc. | לא ישים | המחשב מחובר למכשיר Seahorse XF Pro Analyzer. להורדה מ- https://www.agilent.com/en/product/cell-analysis/real-time-cell-metabolic-analysis/xf-software/software-download-for-seahorse-wave-pro-software?productURL=https%3A%2F%2Fwww.agilent.com%2Fen%2Fproduct%2Fcell-analysis%2Freal-time-cell-metabolic-analysis%2Fxf-software%2Fseahorse-wave-pro-software-2007523. |
| מדיום בסיס סוסון ים XF: מדיום בסיס שטף חוץ-תאי, pH 7.4 | Agilent Technologies, Inc. | 103334-100 | משמש להכנת מלאי וריכוזי עבודה של ריאגנטים הקשורים למיטוכונדריה ולתרבית תאי MH-S לפני ריצות ניסוי. |
| ערכת בדיקת מתח חמצון גלוטמין של סוסון ים XF | Agilent Technologies, Inc. | 103674-100 | מכיל מלאי BPTES, אוליגומיצין, FCCP ורוטנון/אנטימיצין A. |
| מנתח Seahorse XF Pro: ביו-אנלייזר שטף חוץ-תאי | Agilent Technologies, Inc. | לא ישים | ביו-אנלייזר שטף חוץ-תאי. |
| Seahorse XFe96 FluxPak: מחסניות Pak שטף חוץ-תאיות עם 96 בארות, לוחות מיקרו-תרבות שטף חוץ-תאיים עם 96 בארות ופתרון קליברנט | Agilent Technologies, Inc. | 102416-100 | משמש להכנת תאי MH-S לבדיקות באמצעות ביו-אנלייזר שטף חוץ-תאי. |
| פיפט סרולוגי | סנטה קרוז ביוטכנולוגיה, בע"מ | sc-550678 | משמש להסרת מדיה מתאי MH-S. |
| נתרן ביקרבונט | סיגמא אולדריץ' ושות' | S6014 | משמש לטיפוח תאי MH-S. |
| נתרן פירובט | סיגמא אולדריץ' ושות' | P4562 | משמש למדיום הבסיס של השטף החוץ-תאי. |
| צלוחיות T-75 | סנטה קרוז ביוטכנולוגיה, בע" | sc-200263 | משמש לתרבית תאי MH-S. |
מקורות
- 2021 National Survey on Drug Use and Health (NSDUH). Table 5.6A - Alcohol Use Disorder in Past Year: Among People Aged 12 or Older; by Age Group and Demographic Characteristics, Numbers in Thousands, 2021. , Substance Abuse and Mental Health Services Administration (SAMHSA). At https://www.samhsa.gov/data/sites/default/files/reports/rpt39441/NSDUHDetailedTabs2021/NSDUHDetailedTabs2021/NSDUHDetTabsSect5pe2021.htm (2021).
- Everts, R. J., et al. Nosocomial pneumonia in adult general medical and surgical patients at Christchurch Hospital. N Z Med J. 113 (1111), 221-224 (2000).
- de Roux, A., et al. Impact of alcohol abuse in the etiology and severity of community-acquired pneumonia. Chest. 129 (5), 1219-1225 (2006).
- Moss, M. Epidemiology of sepsis: race, sex, and chronic alcohol abuse. Clin Infect Dis. 41 (Suppl 7), S490-S497 (2005).
- Fernandez-Sola, J., et al. High alcohol intake as a risk and prognostic factor for community-acquired pneumonia. Arch Intern Med. 155 (15), 1649-1654 (1995).
- Yeligar, S. M., Harris, F. L., Hart, C. M., Brown, L. A. Glutathione attenuates ethanol-induced alveolar macrophage oxidative stress and dysfunction by downregulating NADPH oxidases. Am J Physiol Lung Cell Mol Physiol. 306 (5), L429-L441 (2014).
- Yeligar, S. M., Mehta, A. J., Harris, F. L., Brown, L. A., Hart, C. M. Peroxisome proliferator-activated receptor gamma regulates chronic alcohol-induced alveolar macrophage dysfunction. Am J Respir Cell Mol Biol. 55 (1), 35-46 (2016).
- Liang, Y., Harris, F. L., Brown, L. A. Alcohol induced mitochondrial oxidative stress and alveolar macrophage dysfunction. Biomed Res Int. 2014, 371593(2014).
- Liang, Y., Harris, F. L., Jones, D. P., Brown, L. A. Alcohol induces mitochondrial redox imbalance in alveolar macrophages. Free Radic Biol Med. 65, 1427-1434 (2013).
- Morris, N. L., Harris, F. L., Brown, L. A. S., Yeligar, S. M. Alcohol induces mitochondrial derangements in alveolar macrophages by upregulating NADPH oxidase 4. Alcohol. 90, 27-38 (2021).
- Crotty, K. M., Kabir, S. A., Chang, S. S., Mehta, A. J., Yeligar, S. M. Pioglitazone reverses alcohol-induced alterations in alveolar macrophage mitochondrial phenotype. Alcohol Clin Exp Res (Hoboken). 48 (5), 810-826 (2024).
- Demine, S., Renard, P., Arnould, T. Mitochondrial uncoupling: A key controller of biological processes in physiology and diseases. Cells. 8 (8), 795(2019).
- Hill, B. G., et al. Integration of cellular bioenergetics with mitochondrial quality control and autophagy. Biol Chem. 393 (12), 1485-1512 (2012).
- Chacko, B. K., et al. The Bioenergetic Health Index: a new concept in mitochondrial translational research. Clin Sci (Lond). 127 (6), 367-373 (2014).
- Fan, Y., et al. Analyzing mitochondrial respiration of human induced pluripotent stem cell-derived myeloid progenitors using Seahorse technology. STAR Protoc. 4 (1), 102073(2023).
- Gu, X., Ma, Y., Liu, Y., Wan, Q. Measurement of mitochondrial respiration in adherent cells by Seahorse XF96 Cell Mito Stress Test. STAR Protoc. 2 (1), 100245(2021).
- Plitzko, B., Loesgen, S. Measurement of oxygen consumption rate (OCR) and extracellular acidification rate (ECAR) in culture cells for assessment of the energy metabolism. Bio Protoc. 8 (10), e2850(2018).
- Winnica, D., et al. Bioenergetic differences in the airway epithelium of lean versus obese asthmatics are driven by nitric oxide and reflected in circulating platelets. Antioxid Redox Signal. 31 (10), 673-686 (2019).
- Nickens, K. P., Wikstrom, J. D., Shirihai, O. S., Patierno, S. R., Ceryak, S. A bioenergetic profile of non-transformed fibroblasts uncovers a link between death-resistance and enhanced spare respiratory capacity. Mitochondrion. 13 (6), 662-667 (2013).
- Mdaki, K. S., Larsen, T. D., Weaver, L. J., Baack, M. L. Age related bioenergetics profiles in isolated rat cardiomyocytes using extracellular flux analyses. PLoS One. 11 (2), e0149002(2016).
- Dranka, B. P., et al. Assessing bioenergetic function in response to oxidative stress by metabolic profiling. Free Radic Biol Med. 51 (9), 1621-1635 (2011).
- Chacko, B. K., et al. Methods for defining distinct bioenergetic profiles in platelets, lymphocytes, monocytes, and neutrophils, and the oxidative burst from human blood. Lab Invest. 93 (6), 690-700 (2013).
- Tyrrell, D. J., Bharadwaj, M. S., Jorgensen, M. J., Register, T. C., Molina, A. J. Blood cell respirometry is associated with skeletal and cardiac muscle bioenergetics: Implications for a minimally invasive biomarker of mitochondrial health. Redox Biol. 10, 65-77 (2016).
- Shah-Simpson, S., Pereira, C. F., Dumoulin, P. C., Caradonna, K. L., Burleigh, B. A. Bioenergetic profiling of Trypanosoma cruzi life stages using Seahorse extracellular flux technology. Mol Biochem Parasitol. 208 (2), 91-95 (2016).
- Nicholls, D. G., et al. Bioenergetic profile experiment using C2C12 myoblast cells. J Vis Exp. 46, e2511(2010).
- Chance, B., Williams, G. R. Respiratory enzymes in oxidative phosphorylation. I. Kinetics of oxygen utilization. J Biol Chem. 217 (1), 383-393 (1955).
- Gerencser, A. A., et al. Quantitative microplate-based respirometry with correction for oxygen diffusion. Anal Chem. 81 (16), 6868-6878 (2009).
- Yeligar, S. M., et al. PPARgamma regulates mitochondrial structure and function and human pulmonary artery smooth muscle cell proliferation. Am J Respir Cell Mol Biol. 58 (5), 648-657 (2018).
- Yeligar, S., Tsukamoto, H., Kalra, V. K. Ethanol-induced expression of ET-1 and ET-BR in liver sinusoidal endothelial cells and human endothelial cells involves hypoxia-inducible factor-1alpha and microrNA-199. J Immunol. 183 (8), 5232-5243 (2009).
- Yeligar, S. M., Harris, F. L., Brown, L. A. S., Hart, C. M. Pharmacological reversal of post-transcriptional alterations implicated in alcohol-induced alveolar macrophage dysfunction. Alcohol. 106, 30-43 (2023).
הדפסות חוזרות והרשאות
