הגברה יציבה במבחנה של תאים דמויי תאי נבט קדמוניים (PGCLCs), מודל חלופי שמקורו בתאי גזע פלוריפוטנטיים של תאי הנבט הקדמוניים העובריים, מתמודדת עם אתגרים טכניים. פרוטוקול זה תומך בהרחבה ארוכת טווח של PGCLCs במצב מבחנה ללא תאי סרום או שכבת הזנה.
מאמר שיטה
תרבית ארוכת טווח של תאים דמויי תאי נבט קדמוניים אנושיים
במאמר זה
סיכום
תקציר
תאי נבט קדמוניים (PGCs) הם קודמנים נפוצים של כל תאי קו הנבט הזכריים והנקביים. PGCs נוצרים בעוברי יונקים לפני ההשתלה והופכים למבשרי תאי נבט ספציפיים למין עם התמיינות מינית של אנלאז' בלוטת המין. מודל ה-in vitro הידוע בכינויו תאים דמויי PGC (PGCLCs), הנוצר מתאי גזע פלוריפוטנטיים אנושיים, הוא תחליף שימושי של ה-PGCs העובריים האנושיים, ומספק הזדמנות ייחודית לחקור את הגמטוגנזה האנושית במבחנה. הפרוטוקול המוצג כאן תומך בהרחבה ארוכת טווח במבחנה של PGCLCs אנושיים. PGCLCs מבודדים טריים נשמרים בתחילה על שכבת הזנה STO ולאחר מכן מורחבים במצב נטול הזנה על תמצית קרום המרתף. ה-PGCLCs לטווח ארוך (LTC-PGCLCs) יכולים להיות מועשרים בתאים חיוביים ל-CD38 והם מוגברים בקלות לעשרות מיליוני תאים כתרבית מונוטונית טהורה, נטולת מזין ונטולת סרום ללא מגבלות נראות לעין כגון הזדקנות. זה אפשרי מעשית להשיג אוכלוסייה טהורה של יותר ממיליון PGCLCs אנושיים מכמה אלפי PGCLCs שבודדו טריים. תרבית התאים LTC-PGCLC האנושית היא מודל שימושי ונוח במבחנה לחקר הביולוגיה של תאי הנבט האנושיים והתמיינות לתאי קו הנבט במורד הזרם.
מבוא
תאי נבט קדמוניים (PGCs) הם הקודמנים המוקדמים ביותר של כל תאי קו הנבט. PGCs אנושיים יוצאים מאפיבלסט אחורי - ככל הנראה תאי מבשר מי שפיר לא מחויבים - בעוברים מוקדמים לאחר ההשתלה, בעוברים בשבוע 2-3 להריון 1,2,3,4,5,6,7. עבור אפיון של PGCs אנושיים ועכברים כאחד, מסלולי האיתות המופעלים על ידי החלבונים המורפוגנטיים של העצם (BMPs) ו-WNT3 ממלאים תפקידים קריטיים 3,6. בעוד שהשראת שלושה גורמי שעתוק, BLIMP1, PRDM14 ו-TFAP2C, נחוצה למפרט של PGCs של עכברים, במפרט PGC אנושי, תפקידו של PRDM14 מצטמצם. SOX17, שניתן לוותר עליו עבור מפרט PGC של עכבר אך הכרחי עבור מפרט PGC אנושי, מושרה על ידי איתות BMP באופן התלוי אך ורק ב-EOMES או ב-EOMES וב-TBXT 7,8,9. PGCs אנושיים נודדים מהאפיבלסט האחורי לכיוון אנלאגן בלוטת המין ברכסי איברי המין דרך המזנטריה הגבית בשבועות 5-6 להריון 10,11,12,13,14,15,16. נדידת ה-PGC האנושית עשויה להיות מונעת על ידי כימוטקסיס, אם כי היא ממתינה לאישור ניסיוני. פרופילים טרנסקריפטומיים של PGCs אנושיים נודדים אינם זהים לאלה של PGCs עכברים באותו שלב17,18. לדוגמה, PGCs אנושיים מבטאים DAZL עוד לפני התיישבותם באנלאגן בלוטת המין, בעוד PGCs של עכברים מבטאים DAZL רק לאחר התיישבות בלוטת המין שלהם9. עם תחילת ההתמיינות הספציפית למין של התאים הסומטיים של בלוטת המין, PGCs עוברים גם התמיינות לפרוספרמטוגוניה (הידועה גם בשם גונוציטים) או אוגוניה.
מכיוון שהגישה ל-PGCs עובריים אנושיים היא מאתגרת ביותר בשל מחסומים טכניים ואתיים, השימוש בתאים דמויי PGC (PGCLCs) שמקורם בתאי גזע פלוריפוטנטיים הופך פופולרי יותר ויותר3. PGCLCs של עכברים דומים לשלב שלאחר הנדידה של PGCs, המאופיין בדמתילציה מתקדמת של DNA גנומי גלובלי (gDNA), והם מסוגלים לייצר זרע וביציות בעלי יכולת הפריה 19,20,21. לעומת זאת, PGCLCs אנושיים דומים לשלבים מוקדמים יותר של PGCs עובריים עם דה-מתילציה גלובלית מוגבלת של gDNA 7,22,23,24. מצטברות ראיות לכך ש-PGCLCs אנושיים, למרות מצבם הלא בוגר יחסית, מסוגלים להתמיין במבחנה לשלבים מתקדמים יותר של תאי נבט הדומים לאוגוניה25,26 או פרוספרמטוגוניה27.
מאז שאירי ועמיתיו פרסמו את הדור הראשון של PGCLCs מתאי גזע פלוריפוטנטיים אנושיים בשנת 20157, מספר מעבדות פרסמו פרוטוקולים שונים לייצור PGCLC אנושי. הפרוטוקולים המוקדמים והסטנדרטיים כוללים היווצרות של אגרגטים של תאים פלוריפוטנטיים, המכונים לעתים קרובות גופים עובריים 7,22,24,26,28,29. ניתן לייצר PGCLCs אנושיים באמצעות פרוטוקולים שונים מבוססי אגרגט החולקים פרופילים טרנסקריפטומיים דומים, שכולם מבטאים בעוצמה גנים מרכזיים של סמני PGC כגון PRDM1, SOX17, TFAP2C, POU5F1 ו-NANOS3, בעוד שהביטוי של סמן הפלוריפוטנטיות SOX2 או סמן PGC בשלב מאוחר DDX4 מדוכא בדרך כלל24. דווח גם על ניסיונות מוצלחים לייצר PGCLCs אנושיים מתרביות תאים חד-שכבתיות לשיפור המדרגיות והנוחות30. למרות שהתפוקה של PGCLCs קטנה יחסית, הייצור המוצלח של PGCLCs אנושיים מתאי גזע פלוריפוטנטיים שמקורם במודלים במבחנה של עוברים בשלב הקיבה תורם באופן משמעותי להבהרת המנגנונים של אפיון קו הנבט והתפתחות PGC בשלב מוקדם 31,32,33,34,35,36.
למרות שהתפוקה והאיכות של PGCLCs אנושיים המיוצרים בשיטות תרבית תאים שונות משתפרות, הקושי הטכני בהרחבת תרבית תאים של PGCLCs אנושיים מהווה מכשול משמעותי ליישומם לניסויים הדורשים כמויות גדולות של אוכלוסיות תאים הומוגניות, כגון סריקה כימית או גנטית, כמו גם ייצור שלבים מתקדמים של תאי קו נבט26. גל ועמיתיו דיווחו על תחזוקה של PGCLCs אנושיים עד 21 יום על מזיני STO במדיום מבוסס FR10 המכיל גורם תאי גזע (SCF), ו-2.5% סרום עגל עוברי (FCS); עם זאת, PGCLCs נטו לסטות מהזהות דמוית ה-PGC לסוגים אחרים של תאים שאולי אינם רלוונטיים להתפתחות תאי קו הנבט37. Murase ואחרים סילקו שוב ושוב תאים לא רצויים כאלה מהתרבית על ידי FACS בכל מעבר והראו כי PGCLCs אנושיים מסוגלים לשמור על פוטנציאל ההתפשטות שלהם לטווח ארוך במבחנה38. מאוחר יותר, Murase ואחרים דיווחו על הגברה מוצלחת של PGCLCs אנושיים במדיום המכיל 2.5% FCS39, אך שיטתם דורשת את תאי שכבת ההזנה m220-5, שהם תת-שיבוטים עמידים ל-MMC של התאים העובריים של עכבר m220 המבטאים את הצורה הקשורה לממברנה של SCF עכבר מווקטור אקסוגני40. נכון להיום, תאי m220-5 עדיין לא הופקדו במאגר נגיש לציבור. לפיכך, נותר אתגר גדול להרחיב את תרבית ה-PGCLC האנושית במבחנה למספר רב של תאים הומוגניים, תוך שמירה על המאפיינים דמויי ה-PGC שלהם במצב פשוט שאינו דורש משאב תאי הזנה לא סטנדרטי וללא ריאגנטים שמקורם בבעלי חיים, שיעילותם עשויה להשתנות בין קבוצות שונות.
כדי להתגבר על המכשול הטכני הנ"ל, פותחה שיטה המאפשרת הרחבה ארוכת טווח במבחנה של PGCLCs אנושיים כאוכלוסיית תאים הומוגנית, תוך שמירה על מאפיינים דמויי PGC במצב נקי מתאי סרום או שכבת הזנה. מכיוון ש-PGCLCs אנושיים מבטאים טלומראז, תאים אלה מתגברים בקצב קבוע ללא סימני הזדקנות או סטייה מסוגים אחרים של תאים במשך 150 יום לפחות. ה-PGCLCs בתרבית ארוכת הטווח (LTC-PGCLCs) שומרים על המאפיינים הטרנסקריפטומיים דמויי ה-PGC האנושיים שלהם, אם כי ה-gDNA הגלובלי שלהם עובר דה-מתילציה צנועה במעברים חוזרים. LTC-PGCLS מומרים בקלות לתאים דמויי תאי נבט עובריים פלוריפוטנטיים (EGCLCs), המשחזרים טרנסקריפטום דמוי iPSC ומתילום gDNA, אם כי ההגבלה האללית המוטבעת של ביטוי ה-RNA H19 הולכת לאיבוד. LTC-PGCLCs מסוגלים גם להתמיין לתאים המבטאים DAZL הדומים לפרוספרמטוגוניה בתרבית האורגנואידים xrTestis xenobiotic27. לפיכך, מודל ה-LTC-PGCLC האנושי מייצג סוג חדש של משאב תרבית תאים מתוחזק ביציבות ורלוונטי לפלוריפוטנטיות השומר לצמיתות על המאפיינים הביולוגיים של PGCLCs ומורחב בקלות במבחנה כקו תאים יציב.
מאמר זה מתאר את השיטה של התאמת אוכלוסייה טהורה מבודדת ומועשרת ב-FACS של PGCLCs אנושיים לתרבית תחזוקה ארוכת טווח נטולת סרום באמצעות תמיכה זמנית על ידי תאי שכבת ההזנה הסטנדרטיים של STO ולאחר מכן במצב נטול הזנה על תמצית ממברנת המרתף (BME). שיטה זו תומכת בהרחבה במבחנה של PGCLCs אנושיים המיוצרים באמצעות פרוטוקול תלוי גוף עוברי, כפי שתואר קודם לכן 24,41,42 או דווח על ידי Sasaki et al 22, ושיטת התרבית החד-שכבתית שדווחה על ידי Overeem et al30. כאשר מיושמים על PGCLCs אנושיים שהוכנו כמתואר41, ניתן להרחיב אוכלוסייה ראשונית של 10,000 תאים לכמעט 1 x 10⁹ תאים תוך 1.5 - חודשיים עם זמן הכפלת אוכלוסייה של 4 - 4.5 ימים41. היישום של שיטה זו על PGCLCs אנושיים המיוצרים בשיטות אחרות צפוי גם הוא.
פרוטוקול
1. הכנת אמצעי תרבית תאים
- הכן מדיה כמתואר בטבלה 1, טבלה 2, טבלה 3 וטבלה 4. אחסן כמויות קטנות של מדיה זו קפואה.
- הכן את המדיום הבסיסי PGCLC כמתואר בטבלה 1. הכינו 40 מ"ל מינון ואחסנו בטמפרטורה של -20 מעלות צלזיוס למשך 6 חודשים. הכן STO בינוני 1 כמתואר בטבלה 2. אחסן 50 מ"ל בצינורות צנטריפוגה של 50 מ"ל בטמפרטורה של 4 מעלות צלזיוס למשך חודש.
- הכן STO בינוני 2 כמתואר בטבלה 3. יש להשתמש מיד. הכן את אמצעי האחסון של תאי STO שטופלו במיטומיצין-C (MMC-STO) כמתואר בטבלה 4. יש לאחסן 10 מ"ל בטמפרטורה של -20 מעלות צלזיוס למשך 6 חודשים.
זהירות: מכיוון שדימתיל סולפוקסיד נחשב למסוכן (נוזל דליק), יש להרחיק אותו מחום, ניצוצות, להבות פתוחות או משטחים חמים. עקוב אחר הפרוטוקול הרגולטורי המקומי לסילוקו.
2. הכנת תאי STO שטופלו ב-MMC
הערה: טיפול MMC בתאי STO משבית את פעילות ההתפשטות שלהם מבלי לפגוע משמעותית בכדאיותם. תאי MMC-STO משמשים כתאי שכבת הזנה במהלך התרבית הראשונית של PGCLCs אנושיים (שלב 4) וכן כמקור המדיום המותנה נטול התאים (שלב 3).
- גדל תאי STO במדיום STO 1 בארבע צלחות P15 עד למפגש קרוב. שנה STO בינוני 1 עד 23 מ"ל למנה. הוסף 23 מיקרוליטר/צלחת בריכוז 10 מ"ג/מ"ל MMC ישירות למדיום לריכוז סופי של 10 מיקרוגרם/מ"ל.
- מערבבים היטב ודוגרים בטמפרטורה של 37 מעלות צלזיוס בחממת CO2 למשך 4 שעות.
זהירות: MMC קטלני אם בולעים כמות גדולה, והוא חשוד כמסרטן. הטיפול והסילוק של תרכובת זו צריכים לפעול בהתאם לפרוטוקולים הרגולטוריים המקומיים. - שטפו תאים עם PBS של 20 מ"ל לצלחת של Dulbecco (ללא Ca/Mg) פעמיים בטמפרטורת החדר.
- נתק תאים עם 4 מ"ל לצלחת TrypLE Express בחממת CO2 למשך 2 דקות. השעו תאים לתרחיף חד-תאי על ידי פיפטינג עדין.
- העבירו שתי צלחות של תרחיף תאים (8 מ"ל) לצינור צנטריפוגה של 50 מ"ל המכיל 30 מ"ל STO בינוני-1 קר כקרח. חזור על הפעולה עבור שתי המנות האחרות כדי ליצור שתי צינורות של תרחיף תאים של 38 מ"ל.
- ספור תאים בנוכחות 0.2% טריפן כחול להערכת כדאיות התא באמצעות המוציטומטר או מונה תאים אוטומטי.
- תאי צנטריפוגה ב-300 x גרם למשך 5 דקות ב-4 מעלות צלזיוס. השליכו סופרנטנט. השעו מחדש כדורי תאים במדיום אחסון תאים קפואים קרים כקרח ל-5 x 10⁶ תאים/מ"ל.
- הכן מיניקוטים של 1 מ"ל של תאי STO שטופלו ב-MMC בבקבוקונים הקריוגניים. מקפיאים תאים לאט בקופסת קלקר או במכשיר הקפאה איטית ומאחסנים בטמפרטורה של -80 מעלות צלזיוס עד 12 חודשים.
3. הכנת מדיום מותנה STO (S-CM)
הערה: תווך מותנה נטול תאים של תאי MMC-STO (הוכן בשלב 2) תומך בהישרדות ובהתפשטות של PGCLCs אנושיים תוך דיכוי הסטייה שלהם לתאים המאבדים מאפיינים דמויי PGC.
- יום 1: הפשירו תאי STO שטופלו ב-MMC ממלאי קפוא וחיסנו 5 x 10⁶ תאים לתוך צלחת P10 מצופה ג'לטין עם 10 מ"ל לצלחת STO-medium 2. הגודל האופייני של אצווה מורכב מ-4 עד 8 מנות P10. דגירה של תאים בטמפרטורה של 37 מעלות צלזיוס בחממת CO2 למשך הלילה.
- לציפוי בארות בג'לטין, יש להוסיף 1 מ"ל/באר של 0.1% ג'לטין ולדגור בטמפרטורת החדר למשך 20 דקות לפחות. שאפו את תמיסת הג'לטין העודפת והשאירו את הבארות פתוחות בארון הבטיחות הביולוגית עד לייבוש. אחסן כלי פלסטיק מצופים ג'לטין בטמפרטורת החדר למשך שבועיים או בטמפרטורה של 4 מעלות צלזיוס למשך 3 חודשים.
- הפשירו כמויות של מדיום הבסיס PGCLC בטמפרטורה של 4 מעלות צלזיוס למשך הלילה.
הערה: לא מומלץ להפשיר מדיום זה מהר יותר בטמפרטורה גבוהה יותר. אין לאחסן מדיום בזאלי PGCLC בטמפרטורה של 4 מעלות צלזיוס במשך יותר משבוע. - יום 2: הסר והשליך את ה-STO-medium 2. שטפו תאים עם DPBS חם (~10 מ"ל/צלחת) ולאחר מכן שטיפה עם PGCLC Basal Medium חם (2 מ"ל/צלחת). הוסיפו PGCLC בזאלי בינוני חם (12 מ"ל לצלחת) ודגרו על תאים בטמפרטורה של 37 מעלות צלזיוס באינקובטור CO2 למשך הלילה.
- יום 3: אסוף את כל המדיום הממוזג בצינור צנטריפוגה של 50 מ"ל. חזור על PGCLC מדיום בזאלי (12 מ"ל/צלחת) ודגירה לאיסוף המדיום המותנה למחרת מאותה תרבית תאי STO. צנטריפוגה המדיום המותנה שנאסף ב-300 x גרם למשך 5 דקות ב-4 מעלות צלזיוס. הכינו 10 מ"ל של הסופרנטנט (S-CM) בצינורות צנטריפוגה של 15 מ"ל. אל תיקח את 3 המ"ל האחרונים של המדיום שנותר בתחתית צינורות 50 מ"ל כדי למנוע זיהום של תאי MMC-STO ב-S-CM. יש לאחסן את הטמפרטורה בטמפרטורה של -80 מעלות צלזיוס למשך עד 6 חודשים.
- יום 4: קציר S-CM על ידי חזרה על שלב 3.4 כל יום עד שהתרבית החד-שכבתית MMC-STO מתדרדרת לאחר 5-6 ימים של תרבית במדיום הבסיסי PGCLC. הפסק את הקטיף כאשר 25% או יותר תאים מנותקים מהצלחת.
4. הסתגלות של PGCLCs אנושיים לתרבות ארוכת טווח
- תרבית PGCLCs אנושיים מבודדים טריים על שכבת ההזנה MMC-STO. הכינו PGCLCs אנושיים בשיטה שפורסמה בעבר (Mitsunaga et al.24; Kobayashi et al.41). פרוטוקולים מפורטים של אינדוקציה של PGCLC אנושי פורסמו גםהם 42,43.
- לאחר ההגברה הראשונית עד 28 יום, שמור על PGCLCs כ-LTC-PGCLCs על ה-BME כתרבית נטולת מזין. לאורך שני השלבים הללו של תרבית PGCLCs, השתמש במדיום מותנה STO (S-CM, שהוכן בשלב 3) עם תוספת SCF אך לא הכללה של FCS. מעכב ה-ROCK נחוץ רק מיד לאחר המעבר.
הערה: כ-BME, נעשה שימוש במטריג'ל בדרגת ESC במעבדה שלנו. מוצרים מסחריים אחרים לא תמכו בהתרחבות ארוכת הטווח של LTC-hPGCLCs. - יום 1: חיסון תאי שכבת הזנת STO שטופלו ב-MMC בצלחות מצופות ג'לטין של 6 בארות ל-8 x 10⁴ תאים/ס"מ2 עם 3 מ"ל/באר STO-medium 2. דגרו את שכבת ההזנה בטמפרטורה של 37 מעלות צלזיוס בחממת CO2 למשך הלילה.
- יום 2: השליכו את מדיום ה-STO מהתרבית ושטפו את התאים עם MEM חם של Dulbecco (ללא סרום), 3 מ"ל/באר. הוסף 3 מ"ל/באר של S-CM טרי בתוספת 0.1 מ"מ 2-מרקפטואתנול, 50 מיקרוגרם/מ"ל חומצה אסקורבית, 100 ננוגרם/מ"ל SCF רקומביננטי אנושי ו-10 מיקרומטר Y-27632. חסנו 500 - 2,000 PGCLCs אנושיים מבודדים טריים על שכבת הזנת STO בכל באר. דגירה של תאים בטמפרטורה של 37 מעלות צלזיוס בחממת CO2 למשך הלילה.
הערה: נוכחות של סרום, אפילו בריכוזים נמוכים, נוטה לגרום להופעתם של סוגים לא רצויים של תאים מ-PGCLCs אנושיים41. הצמיחה של PGCLCs אנושיים תלויה אך ורק ב-SCF41. Y-27632 תומך בהישרדות של PGCLCs אנושיים חד-תאיים בזמן החיסון, אך אינו הכרחי במהלך תרבית תחזוקה. הוסף 2-Mercaptoethanol, חומצה אסקורבית, SCF ו- Y-27632 טרי למדיום. בניסוי טיפוסי, PGCLCs מחוסנים לכל הבארות של צלחת של 6 בארות. אם מספר גדול יותר של PGCLCs זמין כחומר המוצא, צפיפות גבוהה יותר של עד 10,000 PGCLCs לבאר מקובלת. - יום 3: החליפו מחצית מהמדיום (1.5 מ"ל/באר) ב-S-CM חם בתוספת 0.1 מ"מ 2-מרקפטואתנול, 50 מיקרוגרם/מ"ל חומצה אסקורבית, 100 ננוגרם/מ"ל SCF רקומביננטי אנושי אך ללא Y-27632. אל תפריע ל-PGCLCs, שעלולים להתנתק משכבת המזין על ידי זרימה חזקה של מדיום.
- ימים 5 - 28: חזור על שלב 4.5 כל יומיים. מכיוון ש-PGCLCs מתרבים בדרך כלל ב-4.5 ימים של הכפלת אוכלוסייה בזמן41, אשכולות קטנים של PGCLCs מופיעים ביום 6-7 או מאוחר יותר (איור 1A-D). אשכולות יהפכו ברורים יותר ביום 14-15 (איור 1E,F). אם מופיעים סוגים לא רצויים של אשכולות תאיים עם מאפיינים מורפולוגיים חריגים החורגים מה-PGCLCs הנכונים, השליכו בארות המכילות אשכולות כאלה, או נסו לחסל את התאים החריגים באמצעות טכניקת ההדבקה הדיפרנציאלית המתוארת בהמשך שלב 4.9.
- כאשר PGCLCs מתרחבים ליצירת אשכולות המכסים יותר מ-20% משטח התרבית (~יום 28), נתקו תאים באמצעות תמיסת ניתוק התאים (CDS). הסר את S-CM מבארות תרבית PGCLC והוסף CDS מחומם מראש ב-1 מ"ל/באר ללא תאי כביסה. דגרו תאים בטמפרטורה של 37 מעלות צלזיוס בחממת CO2 למשך 5 דקות עד ש-PGCLCs מתנתקים מבארות.
הערה: אקוטאז מומלץ כ-CDS לדיסוציאציה קלה. אין לחמם מראש CDS ב-37 מעלות צלזיוס למשך יותר מ-5 דקות. ניתן להקל על ניתוק PGCLC על ידי פיפטינג עדין, אך אין צורך לנתק את ה-PGCLC לחלוטין לתרחיף תא בודד. אגרגטים קטנים של PGCLCs עשויים להגביר את הכדאיות. אם סוגים לא רצויים של תאים מופיעים וגדלים במהירות, התאם את זמן הדגירה ב-CDS במהלך ניתוק התאים לאיסוף סלקטיבי של PGCLCs, הנוטים להתנתק מוקדם יותר מתאי הזנה ורוב סוגי התאים הלא רצויים. אם הופעתם המתמשכת של סוגי תאים לא רצויים מפריעה להתפשטות של PGCLCs, נסה להסיר את התאים הלא רצויים על ידי שימוש בהדבקה מהירה יותר שלהם לבארות מצופות ג'לטין כמתואר בשלב 4.9. מכיוון שהעשרת PGCLCs על ידי FACS נוטה לאבד חלק משמעותי מה-PGCLCs החיים, צמצם את גודל השטח של שכבת ההזנה בהתאם. - כדי לעצור את ניתוק התאים על ידי CDS, יש לדלל את תרחיף התא בנפח פי 10 של PGCLC בזאלי בינוני חם וצנטריפוגה ב-300 x g למשך 5 דקות ב-4 מעלות צלזיוס. שימו לב שהפעילות האנזימטית של חלק מה-CDS, כגון Accutase, אינה מדוכאת על ידי מעכבי סרום או טריפסין. השליכו את התאים הסופרנטנטים והשעו מחדש ב-3 מ"ל של S-CM חם בתוספת 0.1 מ"מ 2-מרקפטואתנול, 50 מיקרוגרם/מ"ל חומצה אסקורבית, 100 ננוגרם/מ"ל SCF רקומביננטי אנושי ו-10 מיקרומטר Y-27632.
- יש לחסן את תרחיף התאים לבארות של צלחות של 6 בארות המצופות בג'לטין 0.1% ולדגור בטמפרטורה של 37 מעלות צלזיוס באינקובטור CO2 למשך 30 דקות כדי להסיר תאי MMC-STO (וסוגי תאים לא רצויים), הנצמדים במהירות לבארות המצופות בג'לטין.
הערה: מומלץ לבדוק תאים על ידי מיקרוסקופ ניגודיות פאזה ב-20 דקות של הדגירה וכן ב-30 דקות כדי להעריך את ההידבקות של תאי ההזנה. יתכן שיהיה צורך להאריך את זמן הדגירה עד 45 דקות. השימוש ב-FACS או MACS כדי לחסל תאי הזנה אינו הכרחי בדרך כלל מכיוון שתאי STO שטופלו ב-MMC אינם יכולים להתרבות ולהידרדר ב-S-CM. - העבר PGCLCs שהתרוקנו מסוגים חריגים של תאים לבארות מצופות מטריצת קרום מרתף כדי להתחיל בתרבית ארוכת טווח ללא הזנה של PGCLCs אנושיים. עבור באר בודדת בצלחת של 6 בארות, מומלץ לחסן 1 x 10⁵ PGCLCs ברי קיימא.
הערה: בדרך כלל יש צורך לאגד hPGCLCs מעד 6 בארות כדי לאסוף 1 x 10⁵ PGCLCs ברי קיימא (צביעה כחולה שלילית) ולזרוע אותם לבאר אחת כדי להגדיל את צפיפות תאי החיסון. אם מספר ה-PGCLCs שנקטפו אינו מגיע ל-1 x 10⁵, השתמש בגודל קטן יותר של באר, כגון צלחת של 12 בארות או 24 בארות כדי להשיג צפיפות PGCLC גבוהה יחסית. בזמן תת-התרבית הראשונה, רוב תאי שכבת ההזנה של MMC-STO מתדרדרים, והם אינם שורדים את הליך המעבר. מספר קטן של תאי MMC-STO ברי קיימא מוסרים ביעילות על ידי טכניקת ההדבקה הדיפרנציאלית. גם אם כמה תאי MMC-STO מזוהמים בבארות מצופות BME, הם ייעלמו מהתרבית במהלך מעבר מרובה. - PGCLCs אנושיים גדלים כאוכלוסיית תאים מפוזרת מאוד ללא סימן משמעותי למגע פיזי ישיר בין תאים בודדים (איור 1). אם מופיעים אשכולות של תאים שמראים אינטראקציות בין-תאיות הדוקות (איור 2A), עברו את התרבית באמצעות הטכניקה המתוארת בשלב 4.7. פעם בשבוע מספיקים בדרך כלל מעבר (1:4).
הערה: העשרת FACS של PGCLCs אנושיים היא בדרך כלל מיותרת. עם זאת, אם לא ניתן להסיר תאים חריגים לא רצויים ביעילות לאחר טכניקת הידבקות דיפרנציאלית חוזרת המתוארת בשלב 4.11, מספר מחזורים של העשרת FACS של PGCLCs אנושיים כתאים חיוביים ל-CD3842,43 מקלים על הקמת אוכלוסייה טהורה של LTC-hPGCLCs. דוגמאות לתאים חריגים שמקורם ב-PGCLC הגדלים על כלים מצופים BME בהיעדר שכבת הזנה מוצגות באיור 3. חשוב לשמור על צפיפות גבוהה יחסית של תרבית תאי PGCLC כדי להפחית את הסיכון להשראת סוגי תאים לא רצויים.- הכן כלים מצופים BME כמתואר קודם לכן42,43. הפשירו את ה-BME על קרח במקרר או בחדר קר למשך הלילה. אין להפשיר BME קפוא בטמפרטורת החדר או להשתמש באמבט מים חמים.
- Aliquot BME (~200 מיקרוליטר; נפח ה-aliquot נקבע על ידי היצרן עבור כל אצווה ומצוין על תווית הבקבוקון) לתוך צינורות צנטריפוגות סטריליים ומקוררים מראש או צינורות שימור תאים על קרח. חשוב לשמור על ה-BME קר כקרח במהלך החלוקה כדי למנוע התמצקות. אחסן את המינונים ב-80 מעלות צלזיוס.
- מדללים מנה אחת של BME עם 25 מ"ל DMEM/F12 קר כקרח ומורחים לשלוש צלחות של 10 ס"מ (~8 מ"ל/צלחת) או ארבע צלחות של 6 בארות (סה"כ 24 בארות, 1 מ"ל לבאר). דגרו כלים בטמפרטורת החדר למשך שעה לפחות. לאחר הציפוי ניתן לאטום כלים בסרט שקוף ולאחסן בטמפרטורת החדר עד שבוע.
- שאפו מדיום מהכלים מיד לפני השימוש. אין צורך לשטוף את הכלים המצופים.
- שמור על צפיפות גבוהה יחסית של תרבית LTC-PGCLC על ה-BME כדי לדכא את הופעתם של סוגי תאים לא רצויים. מומלץ לעבור PGCLCs כאשר התאים מגיעים ליותר מ-25% מפגש. יש להחליף מחצית מהמדיום (1.5 מ"ל/באר) עם S-CM חם בתוספת 0.1 מ"מ 2-מרקפטואתנול, 50 מיקרוגרם/מ"ל חומצה אסקורבית ו-100 ננוגרם/מ"ל SCF רקומביננטי אנושי.
הערה: חיסון PGCLCs בצפיפות נמוכה יותר מגדיל את הסיכון לייצור תאים לא רצויים. מכיוון שזמן הכפלת האוכלוסייה של PGCLCs אנושיים הוא כ-4.5 ימים41, מעבר שבועי שגרתי מספיק בדרך כלל כדי לשמור על התרבות ארוכת הטווח. הכללת מעכב ROCK (Y-27632) נחוצה רק לאחר המעבר כדי לשפר את כדאיות ה-PGCLC. - אל תפריע ל-PGCLCs, שעלולים להתנתק משכבת המזין על ידי זרימה חזקה של מדיום.
הערה: מכיוון ש-PGCLCs אנושיים מבטאים טלומראז, הם מתרבים ללא סימני הזדקנות נראים לעין כגון קיצור הטלומרים או ביטוי של β-galactosidase41 הקשור להזדקנות. - כאשר PGCLCs אנושיים השיגו שגשוג יציב מבלי לייצר כמויות משמעותיות של סוגי תאים לא רצויים, בחנו את המאפיינים דמויי ה-PGC שלהם על ידי פרופיל ביטוי של גנים סמנים.
הערה: גישות אנליטיות המתאימות לאפיון של כל תא בודד (כגון אימונופלואורסצנטי, FACS או RNA-seq של תא בודד) מעודדות להעריך זיהום אפשרי של סוגי תאים לא רצויים. אם תוצאות של ניתוחים כאלה תומכות באופי דמוי ה-PGC של ה-PGCLCs, הקמת תרבית LTC-hPGCLC מאושרת. - אחסן LTC-PGCLCs קפואים במדיום הקפאת תאים (1 x 10⁶ תאים/מ"ל לכל בקבוקון קריוגני). החל מ-10,000 PGCLCs אנושיים כחומר הראשוני, ניתן להשיג את התפוקה הכוללת של 1 x 10⁶ PGCLCs תוך 6 שבועות. הניחו קופסת נייר או פלסטיק המכילה את הבקבוקונים הקריוגניים בקופסת קלקר אטומה היטב. מניחים את הקופסה האטומה במקפיא של -80 מעלות למשך הלילה להקפאה איטית. לאחר מכן הניחו את הבקבוקונים במקפיא של -80 מעלות צלזיוס או במיכל חנקן נוזלי.
- כדי להתחיל תרבית מבקבוקון של תאים קפואים, בצע את השלבים המתוארים להלן.
- להפשיר תאים במהירות באמבט מים של 37 מעלות צלזיוס עם ניעור ידני תוך שמירה על תחתית הבקבוקון במים. כאשר >80% מהתוכן מופשר בבקבוקון, יבש את הבקבוקון עם טישו נטול מוך או נייר מעבדה שווה ערך ונגב סביב הפקק בעזרת ספוגית אלכוהול.
- העבירו תאים לצינור צנטריפוגה של 15 מ"ל המכיל מדיום בסיסי PGCLC שחומם מראש (37 מעלות צלזיוס). אם נשארים תאים קפואים קטנים בבקבוקון, שחזר אותם עם המדיום הבסיסי PGCLC על ידי פיפטינג.
- תאי צנטריפוגה מיד ב -300 x גרם למשך 5 דקות בטמפרטורת החדר ומסירים סופרנטנט.
- השעו מחדש את גלולת התא עם 9 מ"ל של S-CM מחומם מראש בתוספת 0.1 מ"מ 2-מרקפטואתנול, 50 מיקרוגרם/מ"ל חומצה אסקורבית, 100 ננוגרם/מ"ל SCF רקומביננטי אנושי ו-10 מיקרומטר Y-27632. השעו בעדינות תאים באמצעות קצות פיפטה של 1,000 מ"ל.
- יש לחסן 3 מ"ל/באר ב-3 בארות של הצלחת המצופה BME כדי להתחיל תרבית. נער בעדינות את הלוחות אנכית ואופקית לפיזור אחיד של התאים. הימנע מתנועה מעגלית של רעידות, מכיוון שתנועה כזו תעביר תאים למרכז הבארות. כדאיות התאים מיד לאחר ההתאוששות ממלאי קפוא היא בדרך כלל גדולה מ-80%.
תוצאות
תוצאות מייצגות - PGCLCs יוצרים בדרך כלל אשכולות גלויים על שכבת ההזנה MMC-STO תוך שבועיים לאחר החיסון (איור 1A-D). נדרשים כ-3-4 שבועות עד ש-PGCLCs מוכנים לתרבית ללא מזין. מכיוון ש-PGCLCs מראים פעילות ציטוקינטית חזקה, האינטראקציה הבין-תאית שלהם חלשה כשהם יוצרים אשכולות על שכבת ההזנה (איור 1E,F). PGCLCs שנעים מחוץ לצבירים נצפים לעתים קרובות (איור 1F, ראשי חץ אדומים). ללא שכבת הזנה, LTC-PGCLCs גדלים כתאים מפוזרים עם מעט סימנים של הידבקות בין-תאית, אפילו כאשר צפיפות התאים גבוהה (איור 3). כל LTC-PGCLC שומר על המורפולוגיה המקורית של ה-PGCLC האנושי המבודד הטרי, ומראה סימנים של ציטוקינזיס פעיל. כאשר מופיעים תאים שסטו מהמאפיינים המורפולוגיים דמויי ה-PGC (איור 2), העשרה של PGCLCs על ידי טכניקת הידבקות דיפרנציאלית חוזרת משפרת לעתים קרובות את איכות התרבית. אם תאים חריגים נמשכים, העשרת FACS מדי פעם של PGCLCs כתאים CD38-postive עשויה לעזור.
פרסום קודם זיהה PGCLCs אנושיים כתאים חיוביים ל-PRDM1, חיוביים ל-TFAP2C, אך שליליים ל-SOX241. הם גם מבטאים POU5F1, אבל ה-iPSCs הקודמים שלהם מבטאים גם את סמן הפלוריפוטנטיות הזה41. מומלץ מאוד לאשר פרופילי תפוקה וביטוי סמנים ברמת התא היחיד של ה-PGCLCs האנושיים המתרחבים בהזדמנויות המוקדמות ביותר באמצעות סמנים הניתנים להשראה גנטית, אימונופלואורסצנטי, FACs או RNA-seq של תא בודד. עם זאת, ללא ניתוחים מאשרים כאלה, ניתן להעריך בנוחות את התפוקה והאיכות של PGCLCs אנושיים בנוכחות או בהיעדר תאי ההזנה באמצעות מיקרוסקופ ניגודיות פאזה סטנדרטי כפי שמוצג באיור 1, איור 2 ואיור 3.
במהלך התרבית ארוכת הטווח, LTC-PGCLCs שומרים על אוכלוסיית תאים הומוגנית המכילה תת-אוכלוסייה המתפשטת באופן פעיל, כפי שהראו נתוני RNA-seq קודמים של תא בודד41. הפרופיל הטרנסקריפטומי של ה-PGCLCs המקוריים נשמר במידה רבה, פרט לכך שהביטוי של סמני ה-PGCLC בשלב המוקדם GATA2 ו-GATA3 אובד במהירות41. רמת המתילציה הגלובלית של ה-DNA ב-iPSCs אנושיים היא כ-73%, והיא יורדת לכ-64% ב-PGCLCs41 שזה עתה יוצרו. רמת המתילציה הגלובלית של ה-DNA יורדת עוד יותר ב-LTC-PGCLCs לכ-54% לאחר 12 שבועות של התרחבות במבחנה 41. רוב המאפיינים הטרנסקריפטומיים והאפיגנטיים של LTC-PGCLCs אנושיים הפוכים לחלוטין לאלה שב-iPSCs המקוריים כאשר הם מומרים לתאי נבט עובריים פלוריפוטנטיים, אלא שהסימנים האפיגנטיים הספציפיים לאלל במספר אזורי בקרת הטבעה נמחקים ב-PGCLCs ולעולם לא חוזריםל-41.
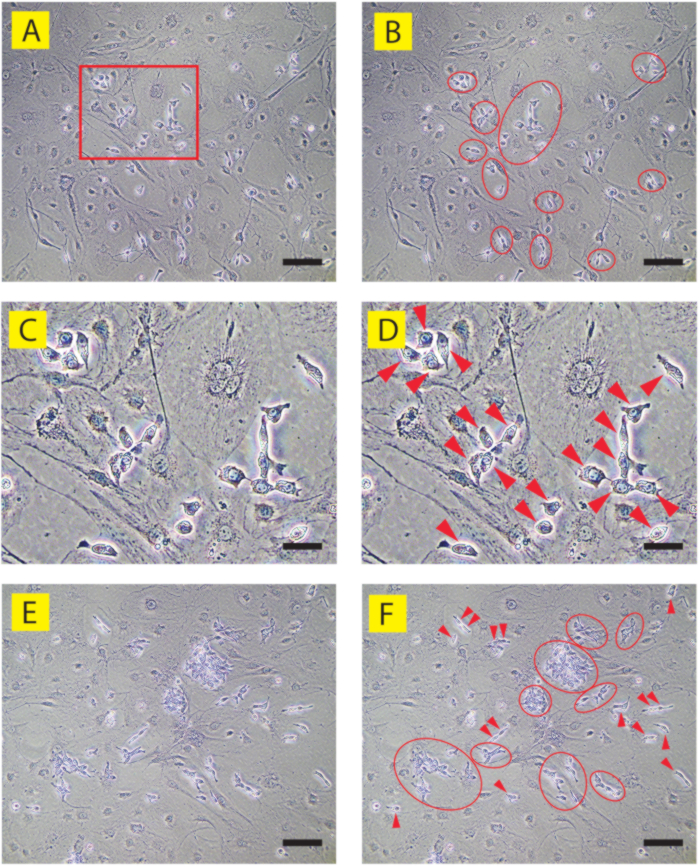
איור 1: תמונות ניגודיות פאזה של PGCLCs אנושיים נכונים על שכבת מזין STO (שיבוט iPSC אנושי 9A13). (A, C, E) מופיעים ב-(B, D, F), בהתאמה. (א-ד) יום 6 תרבות. חלק מ-(A) שמוצג במלבן אדום מוגדל ב-(C, D). רוב ה-PGCLCs נצפים כתאים מפוזרים שלעתים קרובות יוצרים אשכולות רופפים (אליפסות אדומות). PGCLCs בודדים (ראשי חץ אדומים) אינם יוצרים מגע קרוב זה עם זה ומזוהים בקלות במיקרוסקופ ניגודיות פאזה כתאים הבולטים מתאי הזנת STO מתדרדרים, שטוחים ומתפשטים באופן נרחב. (ה, ו) יום 15 תרבות. אשכולות מרובים של PGCLCs מזוהים בקלות (אליפסות אדומות), בעוד שהמגע הבין-תאי עדיין רופף. חלק מה-PGCLCs נמצאים מחוץ לאשכולים, לעתים קרובות כדופלטים (ראשי חץ אדומים), המשקפים את התפשטותם הפעילה תוך נדידה אקראית על ובין שכבת ההזנה הפגומה מאוד. פסי קנה מידה = 50 מיקרומטר (A, B, E, F) או 15 מיקרומטר (C, D). אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
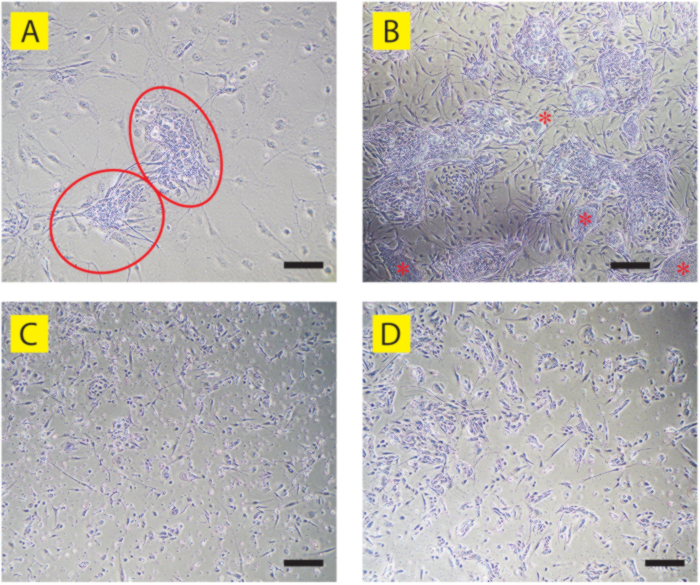
איור 2: תמונות ניגודיות פאזה של PGCLCs אנושיים החורגות מהמאפיינים דמויי ה-PGC. (A) שני אשכולות חריגים של PGCLCs (אליפסות אדומות) הופיעו בתרבית יום 9 של 9A13 PGCLCs על שכבת הזנת ה-STO. בשונה מאשכולות ה-PGCLC הנכונים (ראו איור 1A-D), תאים מראים מגע בין-תאי חזק שמסתיר את הגבולות של כל תא בודד. (B) תרבית יום 18 של תרבית PGCLC אנושית שמוצגת ב-(A). נצפים מספר צבירי PGCLC חריגים, שחלקם מראים מושבות צפופות הדומות ל-iPSCs אנושיים קודמים (כוכביות אדומות). שימו לב שרוב התאים המוארכים דמויי הפיברובלסטים הנמצאים בין האשכולות הם גם תאים חריגים שמקורם ב-PGCLC, בעוד שרוב תאי ההזנה של STO מתדרדרים ונעקרים. (C) LTC-hPGCLCs (שיבוט iPSC אנושי B6) שמראים מוות תאים מסיבי ומורפולוגיה חריגה על כלים מצופים BME ונטולי מזין. (D) LTC-hPGCLCs שסוטים במידה רבה לתאים עם מורפולוגיות חריגות על כלים מצופים BME ונטולי מזין (שיבוט iPSC אנושי T548). השווה את ה-LTC-hPGCLCs החריגים האלה עם ה-LTC-hPGCLCs הנכונים המוצגים באיור 3B. פסי קנה מידה = 50 מיקרומטר (A, B) או 100 מיקרומטר (C, D). אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
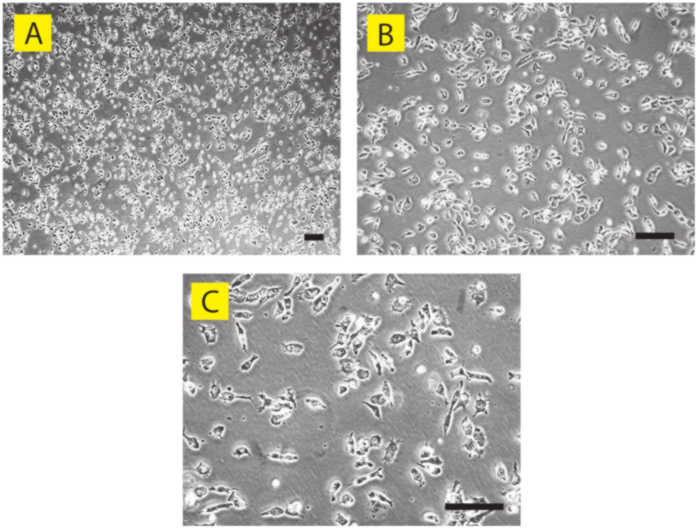
איור 3: תמונות ניגודיות פאזה של PGCLCs אנושיים נכונים כתרבית נטולת מזין (שיבוט iPSC אנושי A4). תרבית נטולת מזין של LTC-PGCLCs ביום 56 על כלים מצופים BME מוצגת בהגדלות (A) נמוכות, (B) בינוניות ו-(C) גבוהות. למרות שצפיפות התאים גבוהה יחסית, כל PGCLC בודד אינו יוצר מגעים בין-תאיים קרובים למעט תאים שהשלימו לאחרונה את חלוקת התאים. בשל הציטוקינזיס הפעיל, חלק מה-PGCLCs מראים מורפולוגיה מוארכת בעוד שאחרים הם בצורת עגול. פסי קנה מידה = 50 מיקרומטר. אנא לחץ כאן לצפייה בגרסה גדולה יותר של איור זה.
| PGCLC בינוני בזאלי | |
| מרכיבים | נפח |
| ה-MEM של גלזגו | 500 מ"ל |
| החלפת סרום נוקאאוט (KSR) | 75 מ"ל |
| מם נאה (100X) | 6 מ"ל |
| נתרן פירובט (100X) | 6 מ"ל |
| פניצילין-סטרפטומיצין (100X) | 6 מ"ל |
טבלה 1: מדיום בסיסי PGCLC. הרכב המדיום הבסיסי PGCLC (593 מ"ל).
| STO בינוני 1 | |
| מרכיבים | נפחא |
| ה-MEM של דולבקו | 445 מ"ל |
| סרום עגל עוברי | 50 מ"ל |
| פניצילין-סטרפטומיצין (100X) | 5 מ"ל |
טבלה 2: STO בינוני 1. הרכב מדיום STO 1 (500 מ"ל).
| STO בינוני 2 | |
| מרכיבים | נפח |
| ה-MEM של דולבקו | 47 מ"ל |
| סרום עגל עוברי | 2.5 מ"ל |
| פניצילין-סטרפטומיצין (100X) | 0.5 מ"ל |
| FGF2 (200 מיקרוגרם/מ"ל) | 2.5 מיקרוליטר |
טבלה 3: STO בינוני 2. הרכב מדיום STO 2, המתווסף ל-FGF2 לצמיחה מוגברת של תאי STO (50 מ"ל).
| אמצעי אחסון MMC-STO | |
| מרכיבים | נפח |
| ה-MEM של דולבקו | 42.5 מ"ל |
| סרום עגל עוברי | 5 מ"ל |
| דימתיל סולפוקסיד | 2.5 מ"ל |
טבלה 4: אמצעי אחסון MMC-STO. הרכב אמצעי האחסון MMC-STO, המשמש להכנת מלאי קפוא של תאי הזנה STO שטופלו ב-MMC (50 מ"ל).
דיון
שיטת תחזוקת PGCLC אנושית המתוארת במאמר זה היא פשוטה יחסית ללא צורך בהתקנים ספציפיים או חומרים לא סטנדרטיים. שיטות שפורסמו בעבר לתחזוקת PGCLC אנושי דורשות מיון FACS תכוף עקב סטייה משמעותית של תאים ממצב דמוי PGCLC38. שיטות אלו דורשות גם קו תאים לא סטנדרטי של שכבת הזנה (m220-5), שאינו זמין בקלות דרך מאגרים נגישים לציבור ובינלאומי 39,40. הכללת FCS במדיה שלהם מציגה אי ודאות עקב תלות בביצועים של חלק מסוים של הסרום. לעומת זאת, השיטה המוצגת כיום משיגה בקלות מיליונים רבים של PGCLCs אנושיים, אותם ניתן לאחסן בהקפאה תוך שמירה על כדאיות גבוהה (> 90%), ללא צורך בסרום או ריאגנטים אחרים המבוססים על בעלי חיים. הפרוטוקול דורש את קו התאים הסטנדרטי של שכבת ההזנה STO, הזמין בדרך כלל במאגרים ציבוריים רבים. השיטה מספקת רמה חסרת תקדים של נוחות לטיפול ב-PGCLCs אנושיים כאילו היו קווי תאים קונבנציונליים. ההיצע הבלתי מוגבל של PGCLCs אנושיים שהושג בשיטה זו ירחיב את היקף יישומי ה-PGCLC האנושיים בתחומים כגון ייצור ניסיוני של תאי נבט אנושיים ו/או גמטות, הערכות של הפרעות בתאי נבט אנושיים כגון פוריות (כולל ניסיונות גמטוגנזה במבחנה) או גידולי תאי נבט, והערכות טוקסיקולוגיות של רעילים פוטנציאליים של תאי נבט.
השיטה אינה כוללת FCS ב-S-CM כדי למזער את הופעתם של סוגים לא רצויים של תאים מ-PGCLCs אנושיים41. מספר שיבוטי iPSC נטו לייצר סוגים לא רצויים של תאים במהלך השלב התלוי במזין או לאחר מכן, וחלקם נאלצו לעבור שניים או שלושה סבבים של טיהור FACS של PGCLCs. עם זאת, ברגע שתרבית LTC-PGCLC מתבססת עם מפגש של יותר מ-50%, הצורך בטיהור FACS מצטמצם בדרך כלל. צמיחה של PGCLCs אנושיים במבחנה תלויה אך ורק בנוכחות SCF41. אם קצב הגידול של LTC-PGCLCs פוחת, מומלץ לבדוק מנות שונות או ריאגנטים SCF של יצרנים. מכיוון ש-PGCLCs אנושיים מבטאים טלומראז, הם אינם חווים הזדקנות במהלך התרחבות ארוכת טווח במבחנה41. הוא שימש בהצלחה להקמת LTC-PGCLCs שמקורם ב-iPSCs אנושיים זכרים ונקבות עם רקע אתני שונה41. דוגמאות ליישום מוצלח של השיטה המוצגת כיום כוללות שיבוטי iPSC אנושיים זכרים A4 ו-A5 (יילוד קווקזי), PGP1 (מבוגר קווקזי) ו-9A13 (מבוגר יפני), ושיבוטי iPSC נקבות ATCC-BXS0116 (קווקזי) ו-ATCC-BXS0115/ACS-1029 (היספני). יש לקבוע את היישום הכללי של שיטה זו וסמני חיזוי במחקרים עתידיים.
הצורך בטיהור FACS מדי פעם של PGCLCs אנושיים תלוי בשיבוט ה-iPSC הקודם. בעוד שכמה שיבוטי iPSC מעולם לא דרשו העשרת FACS לאחר הבידוד הראשוני של PGCLCs כתאים חיוביים ל-CD38, חלק מה-PGCLCs היו צריכים להיות מועשרים כתאים חיוביים ל-CD38 עד פי שלושה על ידי FACS במהלך השלב התלוי במזין. PGCLCs מועשרים ב-FACS חוסנו למזינים MMC-STO שהוכנו לאחרונה. העשרת FACS אינה נדרשת בדרך כלל בכל מעבר ברגע ש-PGCLCs מתחילים בהגברה יציבה על ה-BME ללא המזין.
נתונים מפורטים על שיעור התאים השומרים על המאפיינים דמויי ה-PGC לעומת תאים החורגים לסוגי תאים לא רצויים עבור שיבוט ה-iPSC הבודד בכל מעבר אינם זמינים כעת. באופן כללי, תרבית LTC-hPGCLC מתייצבת לאחר 2-4 שבועות של תרבית עם מעבר חוזר. כאשר PGCLCs אנושיים נוטים לייצר סוגים לא רצויים של תאים, שיטת ההדבקה הדיפרנציאלית עשויה להעשיר ביעילות PGCLCs, מכיוון שרוב התאים הלא רצויים נוטים להיצמד לצלחת התרבית חזק יותר מאשר PGCLCs. אם ניסיונות חוזרים ונשנים של הידבקות דיפרנציאלית אינם מסייעים להעשרת PGCLC, העשרת FACS של PGCLCs אנושיים כתאים חיוביים ל-CD38 מבטלת לעתים קרובות את התאים הלא רצויים, ולאחר מכן, ניתן לשמור על ה-LTC-hPGCLC הטהור בשיטת ההדבקה הדיפרנציאלית בלבד. הקמת תרבות ארוכת טווח של PGCLCs אנושיים שנוצרו בשיטה הדו-ממדית שתוארה על ידי Overeem ואחרים הייתה לפעמים מאתגרת. עם זאת, אותם PGCLCs אנושיים שזכו לעמידות לאפופטוזיס באמצעות נוקאאוט CRISPR של גנים פרו-אפופטוטיים הורחבו בקלות ל-LTC-hPGCLCs. יש לבחון פרטים על התאימות של שיטה זו עם כל iPSCs ו-PGCLCs אנושיים בודדים במחקרים עתידיים.
בעוד שתאי שכבת ההזנה STO שטופלו ב-MMC תומכים בתחילה בהישרדות ובהתפשטות של PGCLCs אנושיים מבודדים טריים, PGCLCs המתרבים במהירות מתרחבים במבחנה ללא שכבת הזנה כל עוד הם נתמכים על ידי המדיום המותנה STO וציפוי BME של הכלים. היתרון הייחודי של השיטה המוצגת כיום על פני גישות אחרות הוא היכולת לבסס LTC-hPGCLCs כתרבית נטולת מזין. תאי שכבת ההזנה MMC-STO מראים סימנים ראשוניים של הידרדרות במדיום S-CM לאחר 5-6 ימי תרבית. ביום 6-7 (איור 1A-D), שכבת ההזנה מראה נזק צנוע, שנעשה ברור יותר ביום 14-15 (איור 1E,F). בהיעדר תאי הזנה, שיעור ההישרדות של PGCLCs אנושיים שבודדו לאחרונה הוא בדרך כלל נמוך, ככל הנראה בשל יעילותם הירודה בהיצמדות לתחתית כלי תרבית התאים. משערים כי חלבוני המטריצה החוץ-תאיים המופקדים על ידי תאי MMC-STO מקלים על ההיצמדות וההישרדות של PGCLCs גם לאחר שתאי MMC-STO מתדרדרים. ברגע שמספר ה-PGCLCs האנושיים יהיה גדול מספיק כדי ליצור אשכולות גלויים ביום 14-15, מטריצה חוץ-תאית המופקדת על ידי ה-PGCLCs עצמם עשויה להספיק כדי לתמוך בהמשך הישרדותם והתפשטותם. תמיכה בהנחה זו, חיסון של PGCLCs אנושיים מבודדים טריים בצפיפות גבוהה (למשל, 100,000 תאים בבאר של צלחת של 12 בארות) לבארות נטולות מזין ומצופות BME יוזם לעתים קרובות הרחבה מוצלחת של תרבית LTC-hPGCLC. מצד שני, השימוש במדיום המותנה MMC-STO נדרש לחלוטין בכל תרבית ה-PGCLC האנושית, תוך הדגשת החשיבות של התניה מתמשכת על ידי תאי MMC-STO.
חשוב לשמור על צפיפות גבוהה יחסית של תרבית LTC-PGCLC על BME כדי לדכא את הופעתם של סוגי תאים לא רצויים. מומלץ לעבור PGCLCs במפגש של יותר מ-25%. חיסון PGCLCs בצפיפות נמוכה יותר מגדיל את הסיכון לייצור תאים לא רצויים. מכיוון שזמן הכפלת האוכלוסייה של PGCLCs אנושיים הוא כ-4.5 ימים41, מעבר שבועי שגרתי מספיק בדרך כלל כדי לשמור על התרבות ארוכת הטווח. אם חלק גדול מה-PGCLCs חורג מהמאפיינים דמויי ה-PGC שלהם, ואם טכניקת ההדבקה הדיפרנציאלית או FACS אינה מספיקה כדי להסיר את התאים הלא רצויים, שקול לחסן את שכבת ההזנה MMC-STO לבארות מצופות BME במקום ציפוי ג'לטין, ו/או להאריך את התרבית של תאי MMC-STO עד 3 או 4 ימים לפני חיסון ה-PGCLCs.
המאפיינים המורפולוגיים וביטוי הסמנים בין סוגי התאים הלא רצויים משתנים באופן משמעותי, אם כי ניתן לזהות אותם בקלות במיקרוסקופ ניגודיות פאזה סטנדרטי (איור 2). תאים המציגים מאפייני צמיחה מצטברים או מראה שטוח חורגים ממאפיינים דמויי PGC. הביטוי של סמני ה-PGC הסטנדרטיים כגון PRDM1 או TFAP2C פוחת בדרך כלל בתאים לא רצויים כאלה, אם כי כיום אין קריטריונים ברורים להבחין בין אוכלוסיית התאים הלא רצויים לבין אוכלוסיית התאים דמוית ה-PGC המשכנעת, שניתן לאשש על ידי צביעה אימונופלואורסצנטית, FACS או RNA-seq של תא בודד. נכון להיום, הזהות או הרלוונטיות של סוגי התאים שאינם PGC המופיעים במהלך ההתרחבות של LTC-hPGCLCs אינן ידועות.
למרות שהשיטה המוצגת במאמר זה משתמשת בתאי שכבת ההזנה של STO, ניתן להשתמש בתאי SNL 76/7 גם לייצור המדיום ושכבת ההזנה הממוזגת. חלק מתרביות PGCLC הצליחו להסתגל לתרבית לטווח ארוך מבלי לעבור את התרבית התלויה במזין, במיוחד כאשר התחלת התרבית עם גודל חיסון גדול (>100,000 תאים). מצד שני, הקמת תרבית LTC-PGCLC עשויה להיות מאתגרת כאשר הגודל ההתחלתי קטן מ-10,000 תאים. למרות שמרכיבי המפתח של המדיום המותנה STO תוארו בעבר, רכיבים התומכים בהרחבת PGCLC לטווח ארוך עדיין לא זוהו44.
גילויים
למחברים אין ניגודי אינטרסים לחשוף.
תודות
עבודה זו נתמכה על ידי מענקי NIH R01ES035401, R21ES034468, R21HD110839, R21DA059789 ו-R21CA290650 ל-TS. TS היא גם זוכת תת-פרס של מענק קרן ג'ון טמפלטון 63299 (PI, John McCarrey, University of Texas, San Antonio). חלק מהמחקר שהוצג נתמך גם על ידי קרן ג'יימס פטריק סטואו (PI, פיליפ סיילור, בית החולים הכללי של מסצ'וסטס).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| צלחות תרבית תאים 6 בארות | קורנינג | 3506 | |
| אקוטאז | טכנולוגיות תאים חדשניות | AT104 | יש לאחסן בטמפרטורה של -20 מעלות; C למשך 6 חודשים. |
| צלחות פלסטיק 10 ס"מ שטופלו בתרבית תאים (כלי P10) | קורנינג | 353003 | |
| צלחות פלסטיק 15 ס"מ שטופלו בתרבית תאים (כלי P15) | קורנינג | 353025 | |
| בקבוקון קריוגני | מיליפופר-סיגמא | CLS431417 | |
| CryoStor CS10 | טכנולוגיות STEMCELL | 7930 | יש לאחסן בטמפרטורה של 4 מעלות צלזיוס. |
| דימתיל סולפוקסיד | פישר סיינטיפיק | BP231-1 | יש לאחסן בטמפרטורת החדר. דרגת תרבית תאים. |
| דולבקו; s תמיסת מלח עם חומצת פוספט (ללא Ca/Mg) (DPBS) | ג'יבקו | 14190144 | יש לאחסן בטמפרטורת החדר. דרגת תרבית תאים. |
| המדיום החיוני המינימלי של Dulbecco (MEM של Dulbecco) | קורנינג | 10-013-ס"מ | יש לאחסן בטמפרטורה של 4 מעלות צלזיוס. nהשתמש במדיום המכיל 4.5 גרם/ליטר גלוקוז, 1X L-גלוטמין ו-1X נתרן פירובאט. |
| סרום עגל עוברי | סרום CPS | FBS-500 | יש לאחסן בטמפרטורה של -20 מעלות; C למשך 12 חודשים. |
| ג'לטין | טכנולוגיות STEMCELL | 7903 | 0.1% במים. עקר. |
| Miminum Essential Medium של גלזגו (MEM של גלזגו) | ג'יבקו | 11710-035 | יש לאחסן בטמפרטורה של 4 מעלות צלזיוס. |
| גורם גדילה פיברובלסטים רקומביננטי אנושי 2 (FGF2) | פפרוטק | 100-18 ב | יש לאחסן בטמפרטורה של -80 מעלות; C למשך 3 חודשים. |
| גורם תאי גזע רקומביננטי אנושי (SCF) | פפרוטק | 300-07 | להרכיב מחדש במים בהתאם להוראות היצרן. יש לאחסן בטמפרטורה של -80 מעלות; C למשך 3 חודשים. |
| החלפת סרום נוקאאוט | ג'יבקו | 10828-028 | יש לאחסן בטמפרטורה של -20 מעלות; C למשך 6 חודשים. |
| מטריג'ל (מוסמך לתאי גזע עובריים אנושיים) | קורנינג | 354277 | |
| מינימום חומצות אמינו חיוניות בינוניות לא חיוניות (MEM NEAA) | ג'יבקו | 11140-050 | יש לאחסן בטמפרטורה של 4 מעלות צלזיוס. |
| מיטומיצין-C (10 מ"מ במים) | מיליפופר-סיגמא | M5353 | ממיסים מיטומיצין-C (MMC) במים ומסנן סטרילי (גודל נקבוביות 0.22 מ"מ). אחסן 100 מ"ל ב-20 מעלות; C למשך 6 חודשים. כדי להפשיר MMC קפוא, יש להפשיר גבישים סגולים באמבט מים חמים (>60 ו-deg; ג) לתמיסה סגולה כהה. |
| פניצילין-סטרפטומיצין (100X) | ג'יבקו | 15140-122 | יש לאחסן בטמפרטורה של 4 מעלות צלזיוס. |
| צינורות צנטריפוגה מפלסטיק (15 מ"ל) | קורנינג | 352196 | |
| צינורות צנטריפוגה מפלסטיק (50 מ"ל) | קורנינג | 352070 | |
| נתרן פירובט (100X) | ג'יבקו | 11360-070 | יש לאחסן בטמפרטורה של 4 מעלות צלזיוס. |
| פיברובלסטים עובריים של עכברי STO | ATCC | CRL-1503 | |
| טריפן כחול (0.4%) | פישר סיינטיפיק | T10282 | יש לאחסן בטמפרטורת החדר. |
| טריפ אקספרס | ג'יבקו | 12604-013 | יש לאחסן בטמפרטורת החדר. |
| Y-27632 (10 מ"מ במים) | טוקריס | 1254 | ממיסים Y-27362, שהוא מעכב ROCK, במים ל-10 מ"מ וסטרילי מסנן (גודל נקבוביות 0.22 מ"מ). אחסן 100 מ"ל ב-20 מעלות; C למשך 6 חודשים. |
מקורות
- Lee, S. M., Smela, M. P., Surani, M. A. The role of KLF4 in human primordial germ cell development. Open Biol. 15 (1), 240214(2025).
- Castillo-Venzor, A., et al. Origin and segregation of the human germline. Life Sci Alliance. 6 (8), e202201706(2023).
- Saitou, M. Mammalian germ cell development: From mechanism to in vitro reconstitution. Stem Cell Rep. 16 (4), 669-680 (2021).
- Boroviak, T., et al. Single cell transcriptome analysis of human, marmoset and mouse embryos reveals common and divergent features of preimplantation development. Development. 145 (21), dec167833(2018).
- Kobayashi, T., et al. Principles of early human development and germ cell program from conserved model systems. Nature. 546 (7658), 416-420 (2017).
- Tang, W. W., Kobayashi, T., Irie, N., Dietmann, S., Surani, M. A. Specification and epigenetic programming of the human germ line. Nat Rev Genet. 17 (10), 585-600 (2016).
- Irie, N., et al. Sox17 is a critical specifier of human primordial germ cell fate. Cell. 160 (1-2), 253-268 (2015).
- Kojima, Y., et al. Evolutionarily distinctive transcriptional and signaling programs drive human germ cell lineage specification from pluripotent stem cells. Cell Stem Cell. 21 (4), 517-532.e5 (2017).
- Alves-Lopes, J. P., et al. Specification of human germ cell fate with enhanced progression capability supported by hindgut organoids. Cell Rep. 42 (1), 111907(2023).
- Chitnis, M. S., Gao, X., Marlena, J., Holle, A. W. The mechanical journey of primordial germ cells. Am J Physiol Cell Physiol. 327 (6), C1532-C1545 (2024).
- Barton, L. J., Roa-De La Cruz, L., Lehmann, R., Lin, B. The journey of a generation: Advances and promises in the study of primordial germ cell migration. Development. 151 (7), dev201102(2024).
- Grimaldi, C., Raz, E. Germ cell migration-evolutionary issues and current understanding. Semin Cell Dev Biol. 100, 152-159 (2020).
- Hen, G., Sela-Donenfeld, D. "A narrow bridge home": The dorsal mesentery in primordial germ cell migration. Semin Cell Dev Biol. 92, 97-104 (2019).
- Cantu, A. V., Laird, D. J. A pilgrim's progress: Seeking meaning in primordial germ cell migration. Stem Cell Res. 24, 181-187 (2017).
- Molyneaux, K. A., et al. The chemokine SDF1/CXCL12 and its receptor CXCR4 regulate mouse germ cell migration and survival. Development. 130 (18), 4279-4286 (2003).
- Sasaki, K., et al. The germ cell fate of cynomolgus monkeys is specified in the nascent amnion. Dev Cell. 39 (2), 169-185 (2016).
- Li, L., et al. Single-cell RNA-seq analysis maps development of human germline cells and gonadal niche interactions. Cell Stem Cell. 20 (6), 891-892 (2017).
- Gomes Fernandes, M., Bialecka, M., Salvatori, D. C. F., Chuva De Sousa Lopes, S. M. Characterization of migratory primordial germ cells in the aorta-gonad-mesonephros of a 4.5-week-old human embryo: A toolbox to evaluate in vitro early gametogenesis. Mol Hum Reprod. 24 (5), 233-243 (2018).
- Hayashi, K., et al. Offspring from oocytes derived from in vitro primordial germ cell-like cells in mice. Science. 338 (6109), 971-975 (2012).
- Ishikura, Y., et al. In vitro reconstitution of the whole male germ-cell development from mouse pluripotent stem cells. Cell Stem Cell. 28 (12), 2167-2179.e9 (2021).
- Miyoshi, N., et al. Erasure of DNA methylation, genomic imprints, and epimutations in a primordial germ-cell model derived from mouse pluripotent stem cells. Proc Natl Acad Sci U S A. 113 (34), 9545-9550 (2016).
- Sasaki, K., et al. Robust in vitro induction of human germ cell fate from pluripotent stem cells. Cell Stem Cell. 17 (2), 178-194 (2015).
- Tang, W. W., et al. A unique gene regulatory network resets the human germline epigenome for development. Cell. 161 (6), 1453-1467 (2015).
- Mitsunaga, S., et al. Relevance of ipsc-derived human pgc-like cells at the surface of embryoid bodies to prechemotaxis migrating pgcs. Proc Natl Acad Sci U S A. 114 (46), E9913-E9922 (2017).
- Yamashiro, C., et al. Generation of human oogonia from induced pluripotent stem cells in vitro. Science. 362 (6412), 356-360 (2018).
- Pierson Smela, M., et al. Rapid human oogonia-like cell specification via transcription factor-directed differentiation. EMBO Rep. 26 (4), 1114-1143 (2025).
- Hwang, Y. S., et al. Reconstitution of prospermatogonial specification in vitro from human induced pluripotent stem cells. Nat Commun. 11 (1), 5656(2020).
- Von Meyenn, F., et al. Comparative principles of DNA methylation reprogramming during human and mouse in vitro primordial germ cell specification. Dev Cell. 39 (1), 104-115 (2016).
- Alves-Lopes, J. P., Wong, F. C. K., Surani, M. A. Human primordial germ cell-like cells specified from resetting precursors develop in human hindgut organoids. Nat Protoc. 19 (4), 1149-1182 (2024).
- Overeem, A. W., et al. Efficient and scalable generation of primordial germ cells in 2d culture using basement membrane extract overlay. Cell Rep Methods. 3 (6), 100488(2023).
- Esfahani, S. N., et al. Derivation of human primordial germ cell-like cells in an embryonic-like culture. Nat Commun. 15 (1), 167(2024).
- Neupane, J., et al. The emergence of human primordial germ cell-like cells in stem cell-derived gastruloids. Sci Adv. 11 (13), eado1350(2025).
- Rodriguez-Polo, I., Moris, N. Using embryo models to understand the development and progression of embryonic lineages: A focus on primordial germ cell development. Cells Tissues Organs. 213 (6), 503-522 (2024).
- Chen, D., et al. Human primordial germ cells are specified from lineage-primed progenitors. Cell Rep. 29 (13), 4568-4582.e5 (2019).
- Zheng, Y., et al. Controlled modelling of human epiblast and amnion development using stem cells. Nature. 573 (7774), 421-425 (2019).
- Zheng, Y., et al. Single-cell analysis of embryoids reveals lineage diversification roadmaps of early human development. Cell Stem Cell. 29 (9), 1402-1419.e8 (2022).
- Gell, J. J., et al. An extended culture system that supports human primordial germ cell-like cell survival and initiation of DNA methylation erasure. Stem Cell Reports. 14 (3), 433-446 (2020).
- Murase, Y., et al. Long-term expansion with germline potential of human primordial germ cell-like cells in vitro. EMBO J. 39 (21), e104929(2020).
- Murase, Y., et al. In vitro reconstitution of epigenetic reprogramming in the human germ line. Nature. 631 (8019), 170-178 (2024).
- Ishikura, Y., Ohta, H., Nagano, M., Saitou, M. Optimized protocol to derive germline stem-cell-like cells from mouse pluripotent stem cells. STAR Protoc. 3 (3), 101544(2022).
- Kobayashi, M., et al. Expanding homogeneous culture of human primordial germ cell-like cells maintaining germline features without serum or feeder layers. Stem Cell Rep. 17 (3), 507-521 (2022).
- Mitsunaga, S., Shioda, K., Isselbacher, K. J., Hanna, J. H., Shioda, T. Generation of human primordial germ cell-like cells at the surface of embryoid bodies from primed-pluripotency induced pluripotent stem cells. J Vis Exp. (143), e58297(2019).
- Mitsunaga, S., Shioda, K., Hanna, J. H., Isselbacher, K. J., Shioda, T. Production and analysis of human primordial germ cell-like cells. Methods Mol Biol. 2195, 125-145 (2021).
- Talbot, N. C., Sparks, W. O., Powell, A. M., Kahl, S., Caperna, T. J. Quantitative and semiquantitative immunoassay of growth factors and cytokines in the conditioned medium of STO and CF-1 mouse feeder cells. In Vitro Cell Dev Biol Anim. 48 (1), 1-11 (2012).
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב