פרוטוקול זה מפרט בדיקת הצואה הכמותית ב-Caenorhabditis elegans צעירים מ-RAC1/CED-10, ומספק מודל פשוט לחקר שלבי מחלת פרקינסון פרודרומליים. היא מתגברת על מגבלות של מודלים בעלי חיים אחרים ומקלה על בדיקות אסטרטגיות טיפוליות המתמקדות בפתולוגיה פרקינסונית מוקדמת.
מאמר שיטה
הערכת תנועתיות מערכת העיכול במוטנטים CAENORHABDITIS elegans RAC1/CED-10 ככלי לחקר מחלת פרקינסון מוקדמת
במאמר זה
סיכום
תקציר
מחלת פרקינסון (PD) היא אחת ההפרעות הניווןיות הנוירודגנרטיביות הנפוצות ביותר ומאובחנת על בסיס תסמינים מוטוריים שמופיעים לאחר אובדן משמעותי של נוירונים דופמינרגיים. תסמינים לא מוטוריים, כמו עצירות, הם הנפוצים ביותר ולעיתים מופיעים מוקדם יותר, מה שמעיד על תחילת המחלה. מודלים רבים של בעלי חיים משמשים לחקר מחלות ניווניות עצבית, אך רובם מתמקדים בשלבים המאוחרים יותר. מכיוון שקשה לקבוע את תחילת הניוון העצבית המדויקת, אין מודל יחיד שמייצג במלואו את כל התקדמות המחלה. מודלים יונקים גוזלים זמן ויקרים במיוחד בשל מחזורי החיים הארוכים שלהם. לעומת זאת, Caenorhabditis elegans (C. elegans), נמטודה שקופה בקוטר 1 מ"מ עם חיים ומחזור רבייה קצרים (~3 שבועות ו-3 ימים), מאפשרת ניסויים מהירים וחסכוניים בזכות תחלופת הדורות המהירה שלה. תוכנית המוטוריקה של הצואה ב-C. elegans מורכבת ממחזורי קצב המוסדרים על ידי רשת גנטית מורכבת שבה משתתפים Rho/rac GTPases, ו-RAC1 (CED-10 ב-C. elegans) הוא בין אלה. הראינו שמוטנטים של RAC1/CED-10 מציגים מורפולוגיה ותפקוד GABAergic פגועים, מה שגורם להפרעות במחזורי הצואה. כאן אנו מציגים את הפרוטוקול הניסויי למדידת עצירות ב-C . elegans מסוג RAC1/CED-10 בשלבים מוקדמים. בנוסף להיותו כלי חיזוי לחקר תסמיני פרקינסון מוקדמים לפני ניווניות נוירולוגית, פרוטוקול זה יכול לשמש גם כנקודת סיום מוקדמת להערכת יעילות ההתערבות הפרמקולוגית. מכיוון ששינויים אלו אינם ספציפיים למחלה, אנו מאמינים שמודל זה מספק כלי חשוב לחקירת שינויים המתרחשים מוקדם במחלות אחרות.
מבוא
מחלת פרקינסון (PD) היא ההפרעה הנוירודגנרטיבית השנייה השכיחה ביותר ואחת הסיבות המובילות לנכות נוירולוגית 1,2. המאפיינים הפתולוגיים שלו כוללים גופי לוי ונויריטים של לוי, המורכבים בעיקר מ-α-סינוקלאין, יחד עם אובדן נוירוני ב-substantia nigra ובאזורים מוחיים אחרים3.
קלינית, פרקינסון מסווג כהפרעת תנועה אך גם מאופיין במגוון רחב של תסמינים לא מוטוריים. ליקויים מוטוריים נובעים מניוון נוירונים דופמינרגיים בגובה הניגר ודלדול הדופמין הסטריאטלי. עם זאת, תסמינים לא מוטוריים – כגון עצירות, חרדה והפרעת התנהגות שינה REM4 – מופיעים לעיתים שנים קודם לכן, בשלב הפרודרומלי, כאשר ניוון נוירולוגי משפיע על מבנים חוץ-שחורים (למשל, גזע המוח, מערכת הריח ונתיבי אוטונום).
אתגר מרכזי במחקר פרקינסון הוא ההופעה הקלינית המאוחרת: תסמינים מוטוריים מופיעים בדרך כלל רקלאחר אובדן 60%-80% מנוירוני הדופמינרגיה, ובשלב זה ההתערבות הטיפולית פחות יעילה. תסמינים לא מוטוריים מוקדמים (למשל, תפקוד לקוי אוטונומי) יכולים לשמש כסמנים ביולוגיים לפרקינסון6 הפרודרומלי, אך אי-הספציפיות שלהם מסבכת את האבחנה הסופית. בהינתן מגבלות אלו, מודלים של בעלי חיים חיוניים לחקר שלבי פרקינסון מוקדמים, לסטנדרטיזציה של אפיון תסמינים ולפיתוח טיפולים נוירופרוטקטיביים – שחסרים כיום – שיכולים להאט או למנוע ניוונות נוירולוגית.
RAC1/CED-10 מוטנטים של C. elegans משחזרים תכונות מפתח בשלבים מוקדמים ומאוחרים של PD6. הראינו בעבר כי פעילות RAC1 קריטית להישרדות ותפקוד נוירונים דופמינרגיים, ומגנה מפני רעילות הנגרמת על ידי α סינוקלאין7. יתרה מזאת, מוטנטים של RAC1/CED-10 מציגים שינויים פנוטיפיים הדומים לפרקינסון מוקדם, כולל חוסר ויסות במטבוליזם השומנים ותפקוד לקוי של GABAerg, כאשר האחרון משתקף במחזורי הצואה המופרעים6. ממצאים אלו קובעים את המוטנטים של RAC1/CED-10 כמודל אפשרי לחקר פתופיזיולוגיה של פרקינסון טרום-ניוונית.
כאן, אנו מתארים בדיקת הצואה אופטימלית למוטנטים של RAC1/CED-10, אשר לוכדת כמותית את דיסמוטיליות המעיים, ומאפשרת מחקר שיטתי של תכונות מערכת העיכול במהלך שלב הפרדרומלי של הפרקינסון.
פרוטוקול
הערה: סוג פראי: נעשה שימוש ב-N2 בריסטול. מודל של PD מוקדם RAC1/CED-10: הזן BR3579 עבר גנוטיפ ced-10(n3246) ונקרא כאן RAC1/CED-10. זו הייתה מתנה נדיבה מד"ר ראלף באומייסטר (אוניברסיטת אלברט-לודוויג, פרייבורג/ברייסגאו, גרמניה). וריאנט זה של ced-10 (n3246) הוא אלל חזק. המוטציה ced-10(n3246) היא מעבר מ-G-to-A שמוביל לשינוי בגליצין 60 של CED-10 לארגינין (G60R), מה שמוביל לשינוי לא אפסי בתפקוד 8,9. חומרת האלל הזה חזקה יותר בהשוואה לאללים אחרים של ced-10 10. הרמפרודיטים שימשו לאורך כל המחקר.
1. תחזוקת תולעים
- שפכו 25 מ"ל מדיום גידול נמטודות (NGM) לתוך צלחות פטרי בעובי 150 מ"מ ואפשרו לאגר להתקשות. זרוע כל צלחת ב-500 מיקרוליטר של תרבית Escherichia coli OP50, תוך פיזור המתלה באופן שווה על פני משטח האגר. דגרו לוחות בטמפרטורה של 30 מעלות צלזיוס במהלך הלילה כדי לאפשר צמיחת חיידקים. הכינו את הצלחות 24 שעות לפני השימוש.
2. השגת תולעים מסונכרנות בשלב הרביעי של התפתחות הזחלים (L4)
- לבצע מדידות של תנועתיות המעי עם תולעים המסונכרנות בשלב הזחל L4 בהתפתחות. כדי להשיג תולעים בשלב זה של ההתפתחות, יש לעקוב אחר פרוטוקול ההלבנה המתואר להלן (מותאם מ-11) עם שינויים קלים הקשורים לפנוטיפ RAC1/CED-1011.
- הוסף 10 בוגרים בהריון לצלחות ה-NGM עם Escherichia coli OP50, שהוכן בשלב 1, כדי להטיל ביצים ולאפשר לתולעים לגדול במשך 3 ימים. חלופה נוספת היא להעביר חתיכת אגר מלוח NGM המכיל אוכלוסייה מעורבת ללוח NGM חדש. במקרה זה, בקרת מחזור החיים אינה מדויקת כמו בשימוש ב-10 בוגרים בהריון. לאחר 80 שעות נצפתה אוכלוסייה מעורבת של C elegans hermaphrodites עם בוגרים בהריון במקרה של סוגי בר. מוטנטים מ-RAC1/CED-10 הראו 6 שעות של עיכוב בהתפתחות6, ולכן בוגרים בהריון הופיעו ב-86 שעות.
הערה: בוגרים בהריון מזוהים כי יש להם ביצים בפנים. - שטיפו פלטות עם 10 מ"ל M9 כדי לשחזר בוגרים בהריון במופופרות של 15 מ"ל (מסומנות בגנוטיפ המתאים).
- פעל את התולעים על ידי צנטריפוגה במשך 2 דקות בעוצמה של 2000 x גרם (~1500 סל"ד בצנטריפוגה שולחנית סטנדרטית) בטמפרטורת החדר, זרוק את הסופרנטנט, והוסף 10 מ"ל של בופר M9 טרי.
הערה: למרות שזה עובד בטמפרטורת החדר, ראינו תוצאות טובות יותר על ידי צנטריפוגה ב-10 מעלות צלזיוס. - בצע שלב 2.4 שלוש פעמים או עד שהבופר נראה נקי מחיידקים (סופרנטנט שקוף). נוכחות חיידקים ניתנת להסקה מהעובדה שהסופרנטנט נראה מעט צהבהב ועכור.
- הוסיפו בופר M9 לנפח כולל של 3.5 מ"ל.
הערה: מניסיוננו, מים מזוקקים סטריליים - או אפילו מי ברז - יכולים לשמש בשלב זה מבלי לגרום לזיהום, שכן תהליך ההלבנה שלאחר מכן מסיר מיקרובים. עם זאת, אנו ממליצים על מים סטריליים או בופר M9 כדי להבטיח שחזור בין המעבדות. - ערבבו 0.5 מ"ל של 5M NaOH עם 1 מ"ל אקונומיקה להכנת תמיסת ההלבנה. הכינו את התמיסה הזו טרייה ממש לפני השימוש. הוסף 1.5 מ"ל מהתערובת לצינור הצנטריפוגה המכיל תולעים.
- ערבבו את הצינורות בעוצמה במהלך ההלבנה תוך ניטור הרס הרקמה הבוגרת תחת מיקרוסקופ ניתוח. עצור את התגובה ברגע שרק עקבות של מבוגרים עדיין נראו.
הערה: טיפול ההלבנה מפרק תולעים וזחלים בוגרים, בעוד שהעוברים נשארים חיוניים כי קליפת הביצה שלהם מגנה עליהם מהלבנה. השלב הזה קריטי כדי להשיג שורדים. עודף זמן יכול להרוג את כל התולעים. מומלץ מאוד להשתמש במערבולת, אבל אז יש לבדוק את ההרס של הקוטיקולה כל 3 דקות. מוטנטים של RAC1/CED-10 רגישים יותר לאקונומיקה. עקוב אחרי התפוררות הרקמה הבוגרת כל 2 דקות ולעולם אל תעלה על 8 דקות. - עצרו את התגובה על ידי הוספת בופר M9 למילוי הצינור (~15 מ"ל). במהירות צנטריפוגה (כי ייתכן שהטיפול עדיין פעיל) למשך דקה אחת בעוצמה של 2,000 x גרם וזרקו את הסופרנאנט.
- שטוף את הכדור 3 פעמים על ידי מילוי הצינור בבופר M9 וצנטריפוגה כפי שתואר לעיל. לאחר הכביסה הסופית, הסר בזהירות את הסופרנטנט עד שנשאר כ-0.1 מ"ל.
- הוסיפו את הביצים האלה לצינור חדש של 15 מ"ל והוסיפו M9 ל-5 מ"ל. דגרו בטמפרטורת החדר עם סיבוב עדין. יש לספק אוורור נכון.
הערה: קיבלנו תוצאות סינכרון טובות באמצעות מי ברז במקום M9 בכל השלבים למעט שלב 2.9. - לאחר 24 שעות, עצרו את הסיבוב, ופתחו את התולעים על ידי צנטריפוגה בעוצמה של 2,000 x גרם למשך דקה אחת בטמפרטורה של 10 מעלות צלזיוס.
- צלחת 30-50 מיקרוליטר של תולעים עם כדורים מהגנוטיפים המתאימים בלוחות NGM בגודל 150 ס"מ שזורעו ב-OP50 ומסומנים בגנוטיפ המתאים. כמה תולעים של RAC1/CED-10 נראו מתות, כתכונה פנימית של הגנוטיפ של RAC1/CED-10 (תצפית אישית). בהתאם לכך, יש להכפיל את נפח המוטנטים האלה ולפקח עליהם ביום הבא.
הערה: נפח התולעים המצופות תלוי בתפוקת פרוטוקול ההלבנה. לעולם אל תעלה על 250 תולעים בכל צלחת, כי המזון ייגמר מהר יותר ותולעים עלולות להיכנס לרעב. ההבדל בזמן ההתפתחות יכול לשמש בחוכמה כדי לתעד את מחזורי הצואה הראשונים של תולעים מסוג פרא ולאחר מכן של RAC1/CED-10 (ראו סעיף הבא). - בדוק תולעים מסוג בר בשלב L4 של התפתחות הזחלים לאחר 34 שעות של דגירות. אותו שלב התפתחותי לתולעי RAC1/CED-10 יושג תוך 40 שעותו-6. להבחין בין תולעים L4 לבין L3 וצעירים על ידי מדידת גודלם (~650 מיקרון) ובדיקת מבנה הוולווה הדמוי ירח12.
3. תיעוד תנועתיות המעיים
- שטוף את הלוחות עם 3 מ"ל M9 כדי לשחזר תולעי L4 לשני צינורות צנטריפוגה של 1.5 מ"ל.
- צנטריפוגה בעוצמה של 2,000 x g למשך דקה אחת (איור 1A), זרקו את הסופרנטנט והוסיפו 1 מ"ל של בופר M9 טרי. חזור על השלב 3 פעמים.
- ציפוי את התולעים האלה בלוח NGM ללא OP50 (איור 1B). עם שלבי הכביסה וההצלחות הסופיים, הסרת החיידקים העודפים.
- העבירו תולעים בנפרד ללוחות עם 12 בארות עם זריעה של 5 מיקרוליטר של חיידקי OP50 (איור 1C). אפשר לתולעים להסתגל למשך שעה אחת בטמפרטורה של 20 מעלות צלזיוס.
הערה: הצלחות הללו נזרעו והותייבשו לפני שהוספו תולעים. עדיף לא להכין את הצלחות מראש כי גידול יתר של חיידקים עלול להקשות על המחשת מחזור ההטלה. - הניחו את לוחות 12 הבארים עם התולעים תחת מיקרוסקופ, ממקמו תולעת אחת והתחילו לרשום אותה. שיא מחזורי הצואה במשך 15 דקות (15 מחזורים; איור 1D). השתמש באובייקטיב 5x להדמיה עם מצלמה שמציעה רזולוציה של 12 ביט וקצב פריימים של 60 פריימים לשנייה (fps). בצע רכישת וידאו באמצעות כלי החיתוך ב-Windows. התחל את ההקלטה כשאתה מזהה את מחזור הצואה הראשון.
הערה: אם המיקרוסקופ מחובר למחשב, ניתן להקליט את המסך ישירות באמצעות כלי החיתוך. אנו ממליצים בחום להחזיק כרונומטר ממוחשב לניטור מחזור ההטלה. לחצו על כפתור ה-Leps בכל פעם בסוף מחזור ההטלה.
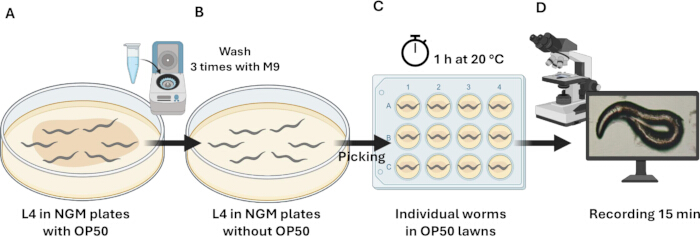
איור 1: תרשים סכמטי של הפרוטוקול הניסויי למדידת תנועתיות המעי. (א) תולעים מסונכרנות בשלב L4 של ההתפתחות. התולעים נאספו ונשטפו 3 פעמים עם M9. (ב) תולעים שנשטפו צופו בלוחות NGM ללא OP50. (C) התולעים נקטפו בנפרד בצלחת של 12 בארות עם OP50 ונתנו להן לזחול במשך שעה אחת בטמפרטורה של 20 מעלות צלזיוס. במהלך תקופה זו, התולעים מסתגלות למדיה החדשה ונרגעות מהלחץ של ההעברה. (ד) תולעים בודדות נרשמו במשך 15 דקות לניתוח תנועתיות המעי. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
4. ניתוח מחזור ההטלה
הערה: אצל C. elegans, תוכנית התנועה של הצואה מורכבת ממחזורי קצב המתוזמנים על ידי רשת גנטית מורכבת. תוכנית זו מורכבת משלוש התכווצויות שרירים עוקבות ומובחנות, שכל אחת ניתנת לזיהוי בקלות תחת מיקרוסקופ חיתול. השלב הראשון כולל כיווץ שרירי דופן הגוף האחורית (pBoc), ואחריו התכווצות שרירי דופן הגוף הקדמית (aBoc), ולבסוף, התכווצויות שריר האנטרי (EMC), שמובילות להוצאת תוכן המעי (Exp)13 (איור 2).
- לבצע ניסויים בטמפרטורה של 20 מעלות צלזיוס. לאחר שכל הסרטונים מוקלטים, התחילו בניתוח נתונים.
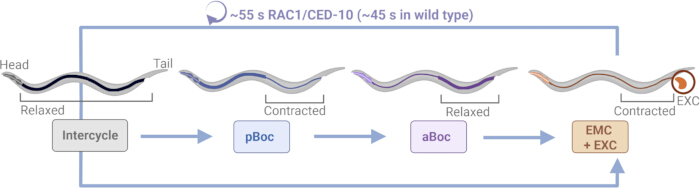
איור 2: מחזור הצואה במוטנטים של C. elegans RAC1/CED-10. ייצוג דיאגרמטי של מחזור הצואה של C. elegans בנמטודות מוטנטיות RAC1/CED-10. pBoc מציין את ההתכווצות של שרירי דופן הגוף האחורית; aBoc מציין את התכווצות שרירי דופן הגוף הקדמית, ו-EMC + EXC מתייחס לפליטת תכולת המעיים. בבעלי חיים פראיים שמזינים ללא הפרעה, תוכנית מוטורית זו מתחילה כל 45 שניות עם סדירות גבוההמאוד 18. התולעים מכוונות כך שהראש פונה שמאלה והזנב ימינה. הפרשה (EXC) מודגשת בכתום. מספר זה שונהמ-6. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
5. ניתוח וידאו
- פתח וידאו אחד עם תוכנת נגן וידאו.
הערה: השתמשנו ב-Windows Media Player Legacy v12. ניתן להשתמש בתוכנות נגן וידאו נוספות. - הכינו את קובץ הגיליון האלקטרוני. פתח את קובץ התבנית שסופק (טבלה משלימה 1). הזן את שם קובץ הווידאו וגודל התולעת (אופציונלי) בשדות המיועדים, ואז התחל את ניגון הווידאו.
- הגדר והקלט את ההפרשה הראשונה. הגדר זמן אפס כרגע שבו מתחיל רישום התולעים תחת מיקרוסקופ. התבוננו באזור פי הטבעת של התולעת וזהו את אירוע ההפרשה הראשון. רשום את הזמן (ב-s) של האירוע הזה בתא המסומן First Excretion של גיליון האקסל.
הערה: זמן ההפרשה הראשונה ישתנה בין תולעים (למשל, תולעת 1 = 5 שניות, תולעת 2 = 26 שניות, תולעת 3 = 34 שניות) מכיוון שמועד ההפרשה האחרונה לפני הרישום אינו ידוע. - רשמו אירועי הפרשה נוספים: המשיכו להשמיע ולתעד כל הפרשה נוספת ברצף (הפרשה 2, הפרשה 3 וכו') עד שהוצגו סך הכל 16 הפרשות.
- חישוב מרווחי מחזור: התבנית קובעת אוטומטית את המרווח בין הפרשות עוקבות (למשל, החרשה 2 - הפרשה 1; הפרשה 3 - הפרשה 2; ...). השתמשו באינטרוולים אלו כאורך המחזור.
- קבעו את זמן המחזור הכולל: לאחר ש-16 האירועים נרשמו, התבנית מחשבת את הזמן הנדרש לתולעת להשלים 15 מחזורים. ערך זה מוצג בתא המסומן זמן כולל בגיליון האקסל. חזור על התהליך הזה עבור כל תולעת.
הערה: נכון להיום, אין תוכנה אוטומטית שמזהה באופן אמין מחזורי הצואה אצל C. elegans. למרות שפלטפורמות כמו WMicrotracker יעילות לכימות פרמטרי תנועה (מהירות, מרחק, מספר תולעת או גודל גוף14,15), הן אינן מספקות את הרזולוציה הנדרשת למעקב אחר אזור פי הטבעת ולזיהוי אירועי התכווצות או הפרשה. לכן, עדיין נדרש ניקוד ידני, בדומה למגבלה שנצפתה בבדיקות של שאיבת לוע16.
6. מדידות אורך מחזור
- ציון אורך המחזור כזמן שבין שתי הפרשות רצופות. חישב על ידי הפחתת זמן הסיום של מחזור אחד מזמן הסיום של המחזור הבא, כפי שמוסבר בטבלה 1 ובמשוואה 1.
אורך מחזור (n) (בשניות) = הפרשה בזמן (n+1) - הפרשה בזמן (n) משוואה 1
אורך המחזור (1סט) = 66 שניות ((הפרשת זמן 2 = 71 שניות) - (הפרשת זמן 1 = 5 שניות)) - עבור כל מערך נתונים, יש לחשב את התקופה הממוצעת של מחזור הצואה, סטיית התקן (SD), ושגיאת התקן של הממוצע (SEM) באמצעות תוכנת ניתוח סטטיסטי.
7. קצביות או סדירות של מחזור הצואה
- מקדם השונות (CV) משמש לתיאור השונות היחסית ולהסביר כיצד הנתונים מפוזרים ביחס לממוצע. הוא שימש בעבר כאינדיקטור לסדירות מחזור הצואה אצל C. elegans6. חשב את ה-CV לכל תולעת על ידי יישום משוואה 2.
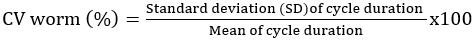 משוואה 2
- עבור כל זן C. elegans , יש לחשב את הממוצע CV, סטיית התקן (SD), ושגיאת התקן של הממוצע (SEM) באמצעות תוכנת ניתוח סטטיסטי.
8. ניתוח סטטיסטי
- ערכו ניסויים בשלושה שכפולים עצמאיים, כאשר חמש תולעים מנותחות לכל מצב. הערך את נורמליות הנתונים באמצעות מבחן שפירו-וילק (α=0.05), המומלץ עבור n < 50.
- מכיוון שמדידות אורך המחזור לא עקבו אחרי התפלגות נורמלית, בוצע ניתוח באמצעות מבחן מאן-וויטני הלא-פרמטרי, המתאים במיוחד לזיהוי הבדלים במדיאנים עם גודל מדגם קטן. לעומת זאת, נתוני CV (%) מפוזרים בדרך כלל; נתח אותם באמצעות מבחן t לא מזווג עם תיקון וולש כדי להתחשב בסטיות לא שוות.
- בצע את כל הניתוחים הסטטיסטיים באמצעות תוכנת ניתוח סטטיסטי. לניסויים הכוללים יותר משני זנים, יש ליישם בדיקה חלופית, כמו ANOVA חד-כיווני, עם אימות רציף של התפלגות הדגימה.
תוצאות
הבדיקה המבוססת על וידאו שתוארה יושמה במודל C . elegans RAC1/CED-10 של PD מוקדם כדי להעריך כמותית את תנועתיות המעיים. בהתחשב בעיכוב ההתפתחותי של מוטנטים RAC1/CED-10, אוכלוסיות מסונכרנות הותאמו כדי להבטיח השוואות תואמות שלבים עם בקרות מסוג פראי. תולעים בודדות נרשמו בשלב L4, ו-15 מחזורי הצואה עוקבים נותחו כדי לקבוע את אורך המחזור והסדירות. גישה זו מאפשרת מדידה מדויקת וברזולוציה גבוהה של תפקוד המוטורי של המעי ומאפשרת זיהוי שינויים עדינים לא-מוטוריים הקשורים לפנוטיפים מוקדמים של פרקינסון ב-C. elegans.
עיכוב התפתחותי בבעלי חיים מסוג RAC1/CED-10 בניסויים מסונכרנים
בהינתן העיכוב ההתפתחותי שנצפה במוטנט6 של C. elegans RAC1/CED-10, ניסויי סינכרון שנעשו במקביל לבעלי חיים מסוג בר דורשים התאמה זמנית. כדי להתחשב בעיכוב זה ולהבטיח השוואות תואמות שלבים במהלך הקלטת הווידאו, בעלי חיים מסוג RAC1/CED-10 צוינו 6 שעות מוקדם יותר מבקרות מסוג בר באותו יום.
תולעי RAC1/CED-10 לחקירת שינויים בצואה הקשורים למחלת פרקינסון
עצירות ניתנת לזיהוי כבר כשני עשורים לפני האבחון של הפרקינסון המוטורי, מה שהופך אותה לאחד הסימנים הראשונים המזוהים שמצביעים על הופעת המחלה17. כבר הראינו בעבר שמודל RAC1/CED-10 מציג שינויים לא מוטוריים בשלב ההתפתחותי L4, לפני הופעת הניוון הנוירודגנרטיבי6, ושינוי בתנועתיות המעיים הוא אחד מהם. כפי שמתואר בפרוטוקול, תולעים בודדות נרשמו בשלב L4. איור 3 מציג תולעת RAC1/CED-10 מייצגת.
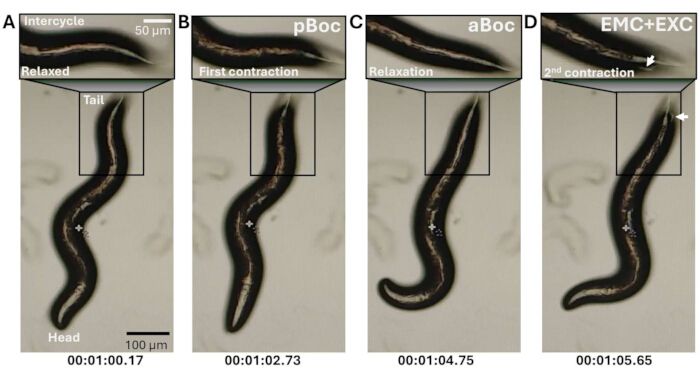
איור 3: מחזור הצואה של C. elegans בתמונות של בעלי חיים מוטנטיים RAC1/CED-10. מחזור הצואה במוטנטים של RAC1/CED-10 בתמונות. התולעים מכוונות ראש כלפי מטה. אזורים בזנב, המסומנים בתיבות אופקיות, מציגים את רצף צעדי התנועה של הצואה כפי שמתוארב-6 ומסודר באיור 2: (א) מסלול קדמי רפוי, (ב) התכווצות הגוף האחורי (pBoc), (ג) התכווצות הגוף הקדמי (aBoc), ו-(ד) התכווצות שרירי המעיים עם הוצאה (EMC+EXC). משך המחזור מצוין להלן. החצים מסמנים חומר שנשלך. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
שני הפרמטרים המשמשים לניתוח תנועתיות המעי הם אורך המחזור וסדירות המחזור13. ראשית, מדדנו 15 מחזורים של כל תולעת, כפי שמיוצגים באיור 4.
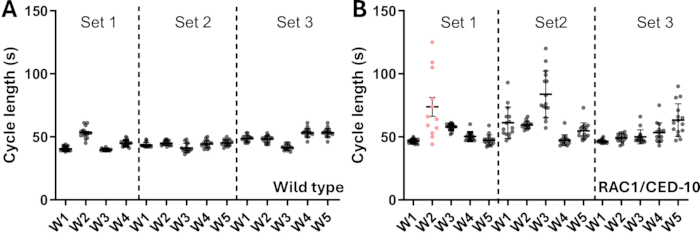
איור 4: משך המחזור של סוגי הבר (A) ופרטים מסוג RAC1/CED-10 (B). סטים 1,2 ו-3 מציינים שכפולים עצמאיים. כל נקודה מייצגת מחזור הצואה אחד, ויש 15 מחזורים לכל תולעת. ה-W2 הוורוד ב-B נזרק לניתוח נוסף כי לא השלים 15 מחזורים. W = תולעת. לא בוצע ניתוח סטטיסטי בתרשים זה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
תולעים בודדות סומנו ב-W (W1, W2 וכו') בין השכפולים הניסיוניים השונות (Set = 1, 2, 3). לכל תולעת (W), נלקחו 15 מדידות במשך 15 דקות. בקבוצת הניסויים הראשונה של בעלי חיים מסוג בר (איור 4A, קבוצה 1), תולעת אחת הוצאה משום שהייתה צעירה בוגרת ולא L4. במקרה של RAC1/CED-10, תולעת אחת הושלכה כי לאחר עיבוד הנתונים היא לא השלימה 15 מחזורים בתוך 15 דקות. בגלל זה, אנו ממליצים להשתמש באפליקציית השעון כדי לדעת כמה מחזורים הושלמו, שכן התולעים של RAC1/CED-10 היו די לא סדירות.
בהתבסס על ערכים בודדים אלו, חושבו ממוצע וסטיית תקן של אורך המחזור עבור תולעים מסוג בר ומוטנטים מסוג RAC1/CED-10 (טבלה 1 ואיור 5). כפי שפורסםבעבר 6, תולעי RAC1/CED-10 מציגות מחזורים ארוכים ופחות סדירים מאשר תולעים מסוג פראי. תולעים מסוג פרא מראות מחזורים קצרים יותר (46 שניות ± 5 שניות) מאשר מוטנטים של RAC1/CED-10 (55 ± 12 שניות).
טבלה 1: מערך נתונים מייצג של מדידות מחזור הפרשה עבור תולעים בודדות. הטבלה מסכמת נתונים מייצגים שנאספו משלושה בעלי חיים. עבור כל תולעת, מערך הנתונים כולל את מזהה קובץ הווידאו, גודל הגוף (μm), נקודות זמן (ב-s) המתאימות לאירועי הפרשה בודדים, אורכי המחזור המחושבים לאורך 15 מחזורים רצופים, ומשך ההקלטה הכולל. אורך המחזור התקבל על ידי חיסור נקודות זמן ההפרשה עוקבות (למשל, עבור VID_154028 תולעת, אורך המחזור הראשון היה 66 שניות, וחושב כ-71-5 שניות). הערכים הנותרים ממחישים מדידות דומות עבור שתי תולעים נוספות, ומספקות דוגמאות לשונות טיפוסית בתוך מאגר הנתונים. אנא לחצו כאן להורדת הטבלה הזו.
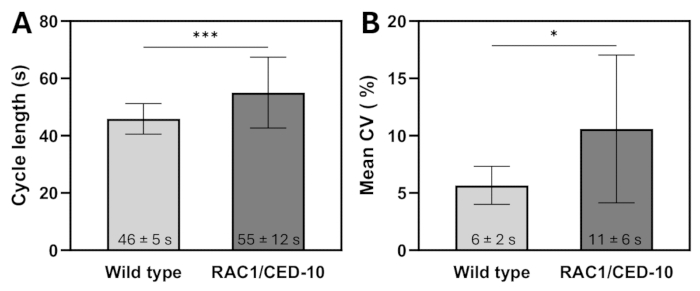
איור 5: פרמטרי מחזור הצואה. (א) אורך מחזור הצואה ו-(ב) CV ממוצע של תולעים מסוג בר ו-RAC1/CED-10. הנתונים מייצגים את הממוצע ± SD. N=3 n=5. מבחן מאן-וויטני לא-פרמטרי הוחל לאורך מחזור ההטלה. מבחן t לא מזווג עם תיקון וולש יושם עבור נתוני CV ממוצעים. p < 0.001 * p < 0.05. ראו שלב 8 למידע על ניתוח סטטיסטי. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
סדירות המחזור מחושבת באמצעות מקדם הממוצע של השונות (CV), שהוא ממוצע מקדמי השונות עבור כל תולעת בניסוי18. איור 5B מראה יותר שונות בבעלי חיים מוטנטים RAC1/CED-10 לעומת בעלי חיים מסוג בר. הממוצע ב-CV הוא 6% ± 2% בסוגי פרא, לעומת 11% ± 6% במוטנטים RAC1/CED-10.
טבלה משלימה 1:תבנית לחישוב אורך מחזור הצואה ב-Caenorhabditis elegans. משתמשים צריכים להזין את שם כל קובץ התולעת בעמודה הראשונה וניתן לרשום את אורך גוף התולעת, באופן אופציונלי. הזמן (ב-s) המתאים לכל אירוע הפרשה (הפרשה 1-16) מוזן ברצף כפי שנקבע מהשמעת וידאו. התבנית מחשבת אוטומטית את המרווח בין הפרשות עוקבות (הפרשה בזמן N - הפרשה בזמן N-1), המייצג את אורך מחזור הצואה. לאחר שהוזנו 16 אירועי הפרשה, הזמן הכולל הנדרש להשלמת חמש עשרה מחזורים מלאים מחושב אוטומטית ומוצג בתא הזמן הכולל (mm:ss). אנא לחצו כאן להורדת הקובץ הזה.
דיון
C. elegans כמודל עוצמתי לחקר פרקנסון פרודרומלי
בעוד שרוב מודלי מחלות ניווניות מוחית מתמקדים בפתולוגיה בשלב מאוחר19, חקר הופעת מחלה מוקדמת נותר מאתגר טכנית. מודלים מסורתיים של יונקים, כמו עכברים, חולדות או פרימטים, מוגבלים על ידי מחזורי חיים ארוכים ועלויות גבוהות. הנמטודה המיקרוסקופית C. elegans מתגברת על מגבלות אלו עם אורך החיים של 3 שבועות, מחזור רבייה של 3 ימים ויכולת טיפול גנטית – מה שהופך אותה למערכת אידיאלית למחקרים יעילים ורחבי היקף של ניוון עצבי6.
מוטנט C. elegans RAC1/CED-10 מספק שלושה יתרונות מרכזיים לחקר פתוגנזה מוקדמת של PD. ראשית, הרזולוציה הזמנית המדויקת שלו מאפשרת לעקוב אחר אירועים ניווניים על פני שלבי התפתחות מוגדריםהיטב 6. שנית, המודל מציע גמישות ניסויית יוצאת דופן באמצעות גמישות גנטית, דרישות תחזוקה נמוכות ותאימות בתפוקה גבוהה 6,7. שלישית, מאחר ש-C. elegans חסר הומולוג אנדוגני α-סינוקליאין, כולל במודל RAC-1/CED-10, הוא מספק יתרון חשוב. חוקרים יכולים לבחון מנגנוני PD פרה-קליני ללא התערבות α-סינוקליאין, מה שמסמן שלב6 מתקדם יותר. זה מציב את המודל ככלי מצוין לחקר אירועים פתוגניים ראשוניים ולשילוב מאוחר יותר של ביטוי α-סינוקלאין לחקר פתוגנזה מתקדמת. לבסוף, השימור האבולוציוני של ההומולוגיה של CED-10 עם RAC1 האנושי מבטיח רלוונטיות תרגומית ישירה10,20.
מודל C. elegans המתואר כאן מתאים היטב לבדיקות פרמקולוגיות17,21. מכיוון שמוטנטים של RAC-1/CED-10 מציגים עיכוב התפתחותי, עיוורון אינו אפשרי בשלב הראשוני, שכן זהותם אינה מוסתרת ביחס לסוג הפראי. עם זאת, בסקרים פרמקולוגיים, ניתן למזער הטיה על ידי אימוץ עיצוב כפול-סמיות שבו הניסוי שאוסף את הנתונים והאדם שמנתח אותם אינם מודעים לכל משתני הניסוי.
עצירות משפיעה כמעט על כל חולי הפרקינסון בשלב הפרודרומלי, לעיתים קרובותלפני תסמינים מוטוריים. C. elegans מציע יתרונות ייחודיים לחקר הפרעה מוקדמת זו של מערכת העיכול. בניגוד למודלים של יונקים הדורשים התערבויות פולשניות, השקיפות והפשטות של הנמטודה מאפשרות תצפית לא פולשנית בזמן אמת על תוכנית התנועה הטריאוטיפית שלה – תכונה קריטית לכימות פגמים בתנועתיות המעי. מחזור החיים הקצר והקצב המדויק של הצואה של C. elegans מאפשרים ניתוח מהיר וניתן לשחזור של ליקויים תפקודיים. במוטנטים של RAC1/CED-10, סטיות בזמני ההטלה משקפות פנוטיפים דמויי עצירות שנצפו בפרקינסון פרודרומלי6. ממצאים אלו מספקים מסגרת יסודית לאימות מאוחר יותר ביונקים מורכבים (למשל, עכברים, פרימטים) תוך קישור ישיר של איתות RAC1 לתפקוד לקוי מעמי.
מעבר לרלוונטיות המכאנית שלו, דגם RAC1/CED-10 מציע גם שימושיות תרגומית. בדיקת הצואה פשוטה, ניתנת לשחזור וניתנת להרחבה, מה שהופך אותה למתאימה לבדיקות סמים בשלבים מוקדמים. תרכובות שמנרמלות את תזמון המחזור או הסדירות יכולות לקבל עדיפות מהירה לבדיקות במודלים יונקים, ולספק מסנן חסכוני למועמדים טיפוליים. מכיוון שתפקוד לקוי במערכת העיכול נפוץ במספר מצבים נוירודגנרטיביים4, מבחן זה עשוי להיות מיושם גם מעבר ל-PD, ולשמש ככלי גילוי וגשר תרגומי למחקר פרה-קליני.
שלבים קריטיים בפרוטוקול
אנו מציגים מתודולוגיה משופרת לחקר דיזמוטיות מעיים במוטנטים RAC1/CED-10, פנוטיפ לא מוטורי מרכזי הרלוונטי לפרקינסון פרודרומלי. למרות שמבוסס על בדיקות הצואה18,22 הקיימות, פרוטוקול זה מתמודד עם אתגרים ייחודיים שמציבים מוטנטים של RAC1/CED-10 כדי להבטיח תוצאות חזקות וניתנות לשחזור.
ההתאמות המרכזיות למוטנטים של RAC1/CED-10 הן כדלקמן:
התאמות סנכרון: מוטנטים של RAC1/CED-10 מציגים פוריות מופחתת בהשוואה לזנים מסוג פרא (תצפית אישית). כדי לפצות על תפוקת הצאצאים הנמוכה יותר, יש לבצע את ההתאמות הבאות במהלך הסינכרוניזציה: שיטת חתיכת הפלטות - השתמשו באינקולום גדול יותר, בערך פי 2 מהנפח המשמש לזנים מסוג פראי, כדי להתחשב בשונות התפתחותית מוגברת. שיטת מבוגר בהריון - העברת 15-20 מבוגרים (לעומת 10 בוגרים) כדי להבטיח מספר מספק של עוברים לניסויים הבאים.
רגישות לאקונומיקה: עוברים ממוטנטים של RAC1/CED-10 מראים רגישות מוגברת לטיפול בהיפוכלוריט. כדי למזער נזק, יש לקצר את זמן החשיפה לאקונומיקה ב-20%-30% לעומת פרוטוקולים פראיים ולאמת את שלמות העובר במיקרוסקופ לאחר הטיפול.
שיקולי עיכוב התפתחותי: מוטנטים של RAC1/CED-10 מתבגרים לאט יותר מתולעים מסוג בר10. כדי להשיג סנכרון נכון להקלטות, יש להתחיל בניתוחי וידאו עם תולעים מסוג פרא כדי לקבוע ייחוס זמני ולתעד מוטנטים בשלבים מורפולוגיים תואמים (למשל, מורפולוגיית הוולוול) במקום לפי גיל כרונולוגי.
היגיון זרימת עבודה: ביצוע ניסויים ראשוניים עם C. elegans מסוג פראי שולט בשונות סביבתית ומספק מקור לקצבי הצואה התקין. עקב עיכובים התפתחותיים במוטנטים מ-RAC1/CED-10-10, יש להתאים את לוחות ההקלטות כך שייתנו עדיפות להשוואות תואמות שלבים (ולא התאמה גילית בלבד).
שיקולי תזמון ספציפיים לזן: עיכובים התפתחותיים אצל מוטנטים דורשים תזמון ניסויי גמיש, עם דגש על התאמת שלבי ההתפתחות בין הגנוטיפים במקום להסתמך רק על גיל כרונולוגי.
מגבלות מודל הנמטודה
בעוד ש-C. elegans חסרה את המורכבות האנטומית וחוסר היתירות במסלולים של מערכות יונקים - מגבלה עבור מחקרים תרגומיים מסוימים - הפשטות שלה מועילה לבחינת פונקציות ביולוגיות בדידוניות. ההתמקדות בתנועתיות המעיים מנצלת את החוזק הזה, שכן הפיזיולוגיה היעילה של הנמטודה מאפשרת ניתוח מדויק של פרמטרים פונקציונליים מסוימים. למרות שמחקרים משלימים ביונקים נחוצים לאימות טיפולי, C. elegans מציעה פלטפורמה יוצאת דופן לחקירה מכנית של תהליכים ביולוגיים משומרים21,23.
המודל שלנו גם חסר α-סינוקלאין אנדוגני, מה שמועיל לחקר מחלת פרקינסון פרה-קלינית מוקדמת, שלב שבו עצירות עלולה להופיע כתסמין פרודרומלי3. אורך מחזור הצואה מספק מדד אובייקטיבי ויעיל, אך הוא משקף רק היבט אחד של תפקוד לקוי במערכת העיכול ואינו ספציפי למחלה.
למרות שמבחן זה אינו תופס הצטברות מתקדמת של α-סינוקליאין, נניונות נוירודגנרית מורכבת או פתולוגיה מערכתית הקשורה לגיל כפי שנצפה בפרקינסון5 באדם, אנו מבחינים בשינויים בתפקוד הדופמינרגי וה-GABAergic ובשיבוש איתות Rac16, מה שמדגיש את הרלוונטיות המכאנית של מודל זה. לכן, הוא נשאר בעל ערך לניתוח מנגנוני נוירו-גסטרואנטסטינליים מוקדמים הקשורים למחלות אישיות ומסלולים משומרים.
גילויים
למחברים אין מה לחשוף.
תודות
A.M.J. מכיר במלגת הדוקטורט (FPU18/05190) במסגרת דוקטורט בביוטכנולוגיה באוניברסיטת ברצלונה האוטונומית. AL ו-AMJ מאשרים במימון PID2021-122645OB-100 ו-PID2024-1576370B-100 על ידי MCIN/AEI//10.13039/501100011033/FEDER "Una manera de hacer Europa"; תוכנית "Severo Ochoa" למרכזי מצוינות, במחקר ופיתוח CEX2019-000917-S (FUNFUTURE), CEX2023-001263-S (MATRANS42), Generalitat de Catalunya 2021S00446, ותוכנית המחקר והחדשנות Horizon Europe של האיחוד האירופי תחת הסכם מענקים מס' 101057527 (NextGEM). EDC מכירה בתמיכה מהמענק APR-2024 (PMI24006), במימון קרן הלימודים העליונים במדעי הבריאות (FESS) וקרן המכון למחקר וחדשנות במדעי החיים ושלום קטלוניה (IRIS-CC).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| לוחות רב-בארים של 12 בארות תרבות, מטופלים, סטריליים | Labbox | CCPP-012-100 | |
| אגר | VWR | AAA10752-0E | להכנת לוחות NGM |
| בקטופטון | VWR | 90000-264 | להכנת לוחות NGM |
| Bleach | כל בית | לתהליך ההלבנה | |
| CaCl2 | לבכם | CACH-02P-1K0 | להכנת לוחות NGM |
| צנטריפוגה סורוול ST8 | סורוול | 15194923 | |
| כולסטרול | סיגמא-אלדריץ' | C8667-25G | להכנת לוחות NGM |
| שעון | חלונות | v 11.2503.4.0 | |
| E. coli OP50 | CGC | OP50 | |
| אתנול | פנריאק | 131086.1214 | להכנת לוחות NGM |
| חממה 20 ו-20; C | אקוגן | CIR180 | |
| KH2PO4 | סיגמא-אלדריץ' | P0662 | להכנת בופר M9 |
| KPO4 | סיגמא-אלדריץ' | P5655 + P3786 | KH2PO4 + K2HPO4; להכנת לוחות NGM |
| MgSO4 | סיגמא-אלדריץ' | M7506 | להכנת לוחות NGM; להכנת בופר M9 |
| מיקרוסקופ | אולימפוס | אולימפוס BX51 | |
| Na2HPO4 | סיגמא-אלדריץ' | S9763 | להכנת בופר M9 |
| Na2HPO4 | סיגמא אולדריץ' | 7558-79-4 | להכנת בופר M9 |
| NaCl | סיגמא-אלדריץ' | S5886 | להכנת לוחות NGM; להכנת בופר M9; LB |
| NaOH | סיגמא-אלדריץ' | 567530 | בתהליך ההלבנה; LB |
| כלי חיתוך ב-Windows | חלונות | V 11.2504.42.0 | |
| טריפטון | קונדה | 1612 | LB |
| תמצית שמרים | קונדה | 1702 | LB |
מקורות
- Cooper, J. F., Van Raamsdonk, J. M. Modeling Parkinson's Disease in C. elegans. J Parkinsons Dis. 8 (1), 17-32 (2018).
- Feigin, V. L., et al. Global, regional, and national burden of neurological disorders, 1990–2016: a systematic analysis for the Global Burden of Disease Study 2016. Lancet Neurol. 18 (5), 459-480 (2019).
- Gaig, C., Tolosa, E. When does Parkinson’s disease begin. Movement Disord. 24 (S2), S656-S664 (2009).
- Camerucci, E., et al. Lifelong constipation in Parkinson’s disease and other clinically defined alpha-synucleinopathies: A population-based study in Southeast Minnesota. Parkinsonism Relat Disord. 107, 105244(2023).
- Tolosa, E., Garrido, A., Scholz, S. W., Poewe, W. Challenges in the diagnosis of Parkinson’s disease. Lancet Neurol. 20 (5), 385-397 (2021).
- Muñoz-Juan, A., et al. Caenorhabditis elegans RAC1/ced-10 mutants as a new animal model to study very early stages of Parkinson’s disease. Prog Neurobiol. 234, 102572(2024).
- Kim, H., et al. The Small GTPase RAC1/CED-10 Is Essential in Maintaining Dopaminergic Neuron Function and Survival Against α-Synuclein-Induced Toxicity. Mol Neurobiol. 55 (9), 7533-7552 (2018).
- Reddien, P. W., Horvitz, H. R. CED-2/CrkII and CED-10/Rac control phagocytosis and cell migration in Caenorhabditis elegans. Nat Cell Biol. 2 (3), 131-136 (2000).
- Shakir, M. A., Gill, J. S., Lundquist, E. A. Interactions of UNC-34 Enabled With Rac GTPases and the NIK Kinase MIG-15 in Caenorhabditis elegans Axon Pathfinding and Neuronal Migration. Genetics. 172 (2), 893-913 (2006).
- Kinchen, J. M., et al. Two pathways converge at CED-10 to mediate actin rearrangement and corpse removal in C. elegans. Nature. 434 (7029), 93-99 (2005).
- Porta-de-la-Riva, M., Fontrodona, L., Villanueva, A., Cerón, J. Basic Caenorhabditis elegans Methods: Synchronization and Observation. J Vis Exp. (64), e4019(2012).
- Herman, T., Hartwieg, E., Horvitz, H. R. sqv mutants of Caenorhabditis elegans are defective in vulval epithelial invagination. Proc Natl Acad Sci. 96 (3), 968-973 (1999).
- Branicky, R., Hekimi, S. What keeps C. elegans regular: the genetics of defecation. Trends Genet. 22 (10), 571-579 (2006).
- Risi, G., et al. Caenorhabditis elegans Infrared-Based Motility Assay Identified New Hits for Nematicide Drug Development. Vet Sci. 6 (1), 29(2019).
- Taki, A. C., Byrne, J. J., Boag, P. R., Jabbar, A., Gasser, R. B. Practical High-Throughput Method to Screen Compounds for Anthelmintic Activity against Caenorhabditis elegans. Molecules. 26 (14), 4156(2021).
- Hahnel, S. R., Roberts, W. M., Heisler, I., Kulke, D., Weeks, J. C. Comparison of electrophysiological and motility assays to study anthelmintic effects in Caenorhabditis elegans. Int J Parasitol Drugs Drug Resist. 16, 174-187 (2021).
- Yu, Q. J., et al. Parkinson disease with constipation: clinical features and relevant factors. Sci Rep. 8 (1), 567(2018).
- Kwan, C. S., Vázquez-Manrique, R. P., Ly, S., Goyal, K., Baylis, H. A. TRPM channels are required for rhythmicity in the ultradian defecation rhythm of C. elegans. BMC Physiol. 8 (1), 11(2008).
- Dawson, T. M., Golde, T. E., Lagier-Tourenne, C. Animal models of neurodegenerative diseases. Nat Neurosci. 21 (10), 1370-1379 (2018).
- Cabello, J., et al. PDR-1/hParkin negatively regulates the phagocytosis of apoptotic cell corpses in Caenorhabditis elegans. Cell Death Dis. 5 (3), e1120(2014).
- Sofela, S., Sahloul, S., Song, Y. A. Biophysical analysis of drug efficacy on C. elegans models for neurodegenerative and neuromuscular diseases. PLoS One. 16 (6), e0246496(2021).
- Thomas, J. H. Genetic analysis of defecation in Caenorhabditis elegans. Genetics. 124 (4), 855-872 (1990).
- Kobet, R. A., et al. Caenorhabditis elegans: A Model System for Anti-Cancer Drug Discovery and Therapeutic Target Identification. Biomol Ther (Seoul). 22 (5), 371-383 (2014).
הדפסות חוזרות והרשאות
