מחקר זה מציג פרוטוקול להערכת השפעות הכורכומין על התנהגות תאי רטינובלסטומה באמצעות אפנון מסלול Wnt/β-catenin וביטוי miR-22.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר מחקר
ויסות מתווך miR-22 של איתות Wnt/β-catenin על ידי כורכומין ברטינובלסטומה
* These authors contributed equally
במאמר זה
סיכום
תקציר
רטינובלסטומה (RB) היא גידול ממאיר תוך עיני נפוץ המשפיע על תינוקות וילדים, אך האטיולוגיה והפתוגנזה המדויקת שלו נותרו לא מובנות לחלוטין. כורכומין, פוליפנול ביו-אקטיבי, מעכב את התקדמות הגידול באמצעות אפנון בתיווך מיקרו-רנ"א של מפל האיתות Wnt/β-catenin. מחקר זה נועד להבהיר כיצד כורכומין מתווך את השפעותיו האנטי-גידוליות ב-RB על ידי חקירת ויסות ביטוי miRNA-22 (miR-22) וחקירת המנגנונים המולקולריים הבסיסיים. שני מודלים מאומתים של רטינובלסטומה (SO-RB50/WERI-Rb-1) טופלו בכורכומין בריכוזים משתנים. כדי לתאר את ויסות ה-miR-22 של איתות Wnt/β-catenin, תאי המטרה הומרו עם miR-22 חיקוי lentivirus או lentivirus בקרה לא פונקציונלי. מודלים של גידול Xenograft הוקמו בעכברים המשתמשים בתאי RB אנושיים כדי לבחון את ההשפעות in vivo של כורכומין על גודל הגידול, ביטוי miR-22 ורמות חלבון Wnt/β-catenin. התפשטות תאים, פלישה ואפופטוזיס הוערכו באמצעות מבחן הצביעה הכפולה CCK-8, Transwell ו-Annexin V-APC-PI, בהתאמה. רמות miR-22 כומתו על ידי RT-PCR, ופרופילי ביטוי Wnt1 ו-β-catenin נקבעו על ידי ניתוח כתמים מערביים. טיפול בכורכומין הביא לירידה בשגשוג ופולשניות בתאי RB, תוך שיפור האפופטוזיס והעלאת ביטוי miR-22. עיכוב miR-22 הפחית את השפעות הכורכומין על מסלול האיתות Wnt/β-catenin. במחקרי קסנוגרפ, כורכומין הפחית משמעותית את גודל הגידול ושיפר את ביטוי miR-22 בתוך הגידולים, ודיכא ביעילות את איתות Wnt/β-catenin. ממצאים אלה מדגימים כי כורכומין מעכב התפשטות ופולשניות של תאי RB תוך קידום אפופטוזיס, בעיקר באמצעות הגברת ויסות miR-22 ועיכוב לאחר מכן של מסלול Wnt/β-catenin.
מבוא
רטינובלסטומה (RB), ממאירות בילדים עם אגרסיביות גבוהה הנובעת ברקמות הרשתית, מהווה איום בריאותי משמעותי, במיוחד לילדים מתחת לגיל חמש. מוטציות גנטיות, במיוחד אלה המשפיעות על הגן RB1, קשורות קשר הדוק להתפתחות מחלה זו1. בהתחשב בשכיחות המשמעותית של רטינובלסטומה (RB) בקרב תינוקות וילדים, יחד עם העובדה שכ-9000 מקרים חדשים מדווחים מדי שנה, בעיקר במדינות בעלות הכנסה נמוכה ומתפתחות, הבנה מקיפה של מנגנוני המחלה היא הכרחית לפיתוח אסטרטגיות טיפוליות יעילות ושיפורתוצאות המטופלים. במהלך השנים, המחקר על RB התמקד בעיקר בשינויים גנומיים, במיוחד בביטוי miRNA3. אין ספק, miR-34a ו-miR-22 התגלו כשחקנים חיוניים בגידול של RB 4,5. מבין ה-miRNAs הללו, miR-22 הוכיח את מעורבותו בגידול בסוגי סרטן שונים 6,7,8, והשפיע על התפשטות, פלישה ונדידה 6,9. יתר על כן, מחקרים קודמים הצביעו על ביטוי מופחת של miR-22 הן בשורות תאי RB של עכברים והן בבני אדם, מה שמדגיש עוד יותר את תפקידו הפוטנציאלי במחלה זו10.
כורכומין, כורכומינואיד ביו-אקטיבי עיקרי בקני שורש Curcuma longa, היה מרכיב בסיסי ברפואה המסורתית ובמטבחים אסייתיים11. הפרופיל הפרמקולוגי העשיר שלו, הכולל השפעות אנטי-גידוליות, אנטי-מיקרוביאליות, אנטי דלקתיות, נוגדות חמצון ונוירו-פרוטקטיביות, זכה לתשומת לב משמעותית במחקר הביו-רפואי 12,13,14. מחקרים רבים חקרו את תפקידו האנטי-גידולי ב-RB, והדגישו את השפעתו על מסלולי איתות שונים, כולל NF-κB15, JAK/STAT16 ו-MRP117. בהשוואה למסלולים הללו שנחקרו בעבר, ציר הכורכומין-miR-22/Wnt/β-catenin עשוי להציע גישה ממוקדת וספציפית יותר, מה שעשוי לשפר את היעילות הטיפולית ולהפחית את ההשפעות החריגות.
מחקרים קודמים הציעו כי כורכומין משיג השפעות אנטי-גידוליות באמצעות אפנון ציר מסלול האיתות TET1/Wnt/β-catenin בקרצינומה הפטו-תאית18 ובתאי סרטן המעי הגס19. עם זאת, לא ידוע אם כורכומין יכול לדכא את התקדמות הגידול בתאי RB על ידי השפעה על מסלול האיתות Wnt/β-catenin. מחקרים אחרונים דיווחו על ירידה בביטוי miR-22 בתאי רטינובלסטומה וקרצינומה של תאי קשקש בפה הקשורה לשינויים בפעילות מסלול האיתות Wnt/β-catenin20,21. בהתחשב ביישום המעשי, כורכומין מפגין פעילות אנטי-גידולית יעילה בטווח ריכוזים מוגדר (10-40 מיקרומטר במבחנה)15,22 וניתן לתת אותו in vivo עם תכונות פרמקוקינטיות הניתנות לניהול, מה שמקל על מחקר תרגומי. לכן, מחקר זה נועד לבסס מודל RB כדי לחקור האם כורכומין מעלה את רמות miR-22 וכתוצאה מכך מפחית את פעילות האיתות Wnt/β-catenin, ומספק אסטרטגיה טיפולית יעילה ורלוונטית יותר מבחינה קלינית בהשוואה לגישות אפנון NF-κB, JAK/STAT או MRP1 קונבנציונליות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל ההליכים הנוגעים לבעלי חיים נבדקו ואושרו על ידי ועדת האתיקה והרווחה של בעלי חיים (AEWC) של בית החולים לעיניים בטיאנג'ין (אישור מס'. NKYY-DWLL-2023-054). הריאגנטים והציוד המשמש מפורטים בטבלת החומרים.
1. תרבית תאים
תאים של קווי הרטינובלסטומה האנושיים WERI-Rb-1 ו-SO-RB50 תורבבו במדיום Eagle המותאם של Dulbecco בעל גלוקוז גבוה בתוספת 10% סרום בקר עוברי ו-1% פניצילין-סטרפטומיצין. התאים נזרעו בצפיפות מתאימה בצלוחיות תרבית ונשמרו בטמפרטורה של 37 מעלות צלזיוס באווירה לחה המכילה % CO2. המדיום הוחלף כל 2-3 ימים, והתאים הועברו במפגש של 70%-80% באמצעות טריפסיניזציה סטנדרטית.
2. ניסויים בבעלי חיים
בסך הכל נעשה שימוש ב-48 עכברי Balb/c עירומים נטולי פתוגנים ספציפיים (בני 4 שבועות, 16-18 גרם). בעלי החיים שוכנו בכלובים סטריליים ומאווררים בנפרד תחת זרימת אוויר למינרית בתנאי סביבה מבוקרים של 26-28 מעלות צלזיוס ולחות יחסית של 40%-60%. מזון, מים ומצעים עוקרו לפני השימוש. לעכברים ניתנה גישה חופשית למזון ומים והתאקלמו במשך שבוע לפני הניסויים.
3. קיבוץ וטיפול בבעלי חיים
תאי WERI-Rb-1 ו-SO-RB50 שהועברו ביציבות עם חיקוי miR-22 או רצף בקרה שלילי שימשו לחיסון הגידול. תאים בשלב גידול לוגריתמי נקצרו, הושעו מחדש בתמיסת מלח סטרילית עם פוספט, והותאמו לצפיפות של 5 × 10⁷ תאים למ"ל. כל עכבר הוזרק תת עורי עם 0.1 מ"ל מהתרחיף לגפה הקדמית הימנית. העכברים חולקו באופן אקראי לשש קבוצות (n = 6 לקבוצה): קבוצת מודל, קבוצת כורכומין, קבוצת חיקוי miR-22, קבוצת miR-22 חיקוי + כורכומין, קבוצת ביקורת שלילית miR-22 וקבוצת ביקורת שלילית miR-22 + כורכומין. בקבוצות שקיבלו כורכומין, העכברים קיבלו זריקות תוך צפקיות של 15 מ"ג/ק"ג כורכומין פעם ביום, החל מיד לאחר חיסון תאי הגידול. הקבוצות הנותרות קיבלו כמויות שוות של DMSO כבקרת רכב.
4. מדידת משקל ונפח הגידול
שיעור נטילת הגידול היה כ-80%-90% בעכברים עירומים מושתלים. גודל הגידול נמדד מדי שבוע באמצעות קליפר דיגיטלי, כאשר הקוטר הארוך ביותר נרשם כאורך (L) והקוטר הקצר ביותר נרשם כרוחב (W). נפח הגידול חושב באמצעות הנוסחה V = (L × W2)/2. עכברים היו במעקב קבוע אחר צמיחת הגידול ומצבו הבריאותי, ונקודות קצה הומאניות יושמו אם הגידולים עלו על 1,500 מ"מ3 או אם בעלי חיים הראו סימני מצוקה או ירידה במשקל. בסוף שבוע 4, עכברים הומתו בשאיפתCO2 ואחריה נקע צוואר הרחם כדי להבטיח מוות. הגידולים נותחו ונשקלו מיד לאחר ההסרה.
5. טרנספקציה של מיקרו-רנ"א
אוליגונוקלאוטידים סינתטיים, כולל חיקוי miR-22, בקרה שלילית, אנטי-miR-22 (20-מתוקסי-שונה), אנטי-miR שלילי, siRNAs ספציפיים ל-Wnt1 ו-siRNA בקרה, שימשו לטרנספקציה. תאים במפגש של 70%-80% נזרעו בצלחות של 6 בארות יום אחד לפני הטרנספקציה. הטרנספקציה בוצעה באמצעות ריאגנט על בסיס שומנים בהתאם להוראות היצרן. עבור כל באר, חומצות גרעין דוללו במדיום נטול סרום ושולבו עם מגיב הטרנספקציה ביחס המומלץ ליצירת קומפלקסים, שהודגרו במשך 15-20 דקות בטמפרטורת החדר לפני שנוספו טיפה לתאים במדיום שלם. הנפח הסופי לבאר היה 2 מ"ל. לאחר 6 שעות דגירה ב-37 מעלות צלזיוס עם 5% CO2, המדיום הוחלף במדיום שלם טרי. התאים נשמרו במשך 48 שעות לפני הבדיקות הבאות. יעילות הטרנספקציה הוערכה על ידי PCR כמותי בזמן אמת. שלושה siRNAs שונים המכוונים ל-Wnt1 (si-Wnt1-1: 5'-CCAAGAGTCTGCAACTGGTACTCGA-3'; si-Wnt1-2: 5'-CGAGAAACGGCGTTTATCTTCGTA-3'; si-Wnt1-3: 5'-GCTTCCTCATGAACCTTCACAACAA-3') שימשו בנפרד או כתערובת שווה ערך כדי למזער השפעות מחוץ למטרה.
6. בדיקת ערכת ספירת תאים -8 (CCK-8)
התאים נזרעו לתוך צלחות של 96 בארות בצפיפות של 5 × 10³ תאים לבאר ב-100 מיקרוליטר של מדיום שלם ואפשרו להם להיצמד למשך הלילה. לאחר טיפול בריכוזים המצוינים של כורכומין למשך הזמן שצוין, נוספו 10 מיקרוליטר של תמיסת עבודה CCK-8 ישירות לכל באר. בארות שהכילו מדיום בלבד שימשו כבקרות ריקות. הלוחות הודגרו ב-37 מעלות צלזיוס עם 5% CO2 למשך 4 שעות, ולאחר מכן נמדדה הספיגה ב-490 ננומטר באמצעות קורא מיקרו-פלטות. כדאיות התא חושבה כך:
כדאיות (%) = 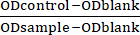 x 100
נוצרו עקומות מינון-תגובה, והריכוז המעכב החצי מקסימלי (IC50) של כורכומין נקבע בהתאם.
7. בדיקת Transwell
לצורך בדיקת הנדידה, התאים הושעו בתווך נטול סרום ונזרעו לתוך התאים העליונים של תוספות Transwell (גודל נקבוביות 8 מיקרומטר) ב-3 ×-105 תאים ב-200 מיקרוליטר לכל הוספה. החדרים התחתונים מולאו ב-600 מיקרוליטר של מדיום שלם המכיל 10% סרום בקר עוברי כחומר משיכה כימי. הצלחות הודגרו בטמפרטורה של 37 מעלות צלזיוס עם 5% CO2 למשך 24 שעות. לאחר הדגירה, תאים לא נודדים על פני השטח העליונים של הממברנה הוסרו בעדינות בעזרת צמר גפן סטרילי. התוספות נשטפו פעמיים במי מלח עם פוספט, קובעו ב-5% גלוטרלדהיד בטמפרטורה של 4 מעלות צלזיוס למשך 30 דקות, נשטפו שוב ונצבעו ב-0.1% סגול קריסטל למשך 30 דקות בטמפרטורת החדר. עודפי צבע הוסרו על ידי שטיפה ב-PBS. ממברנות הורשו להתייבש באוויר, ותאים נודדים הודגמו תחת מיקרוסקופ הפוך בהגדלה של 400× לצורך כימות צולמו שלושה שדות אקראיים לכל תוספת, וחושב מספר התאים הממוצע.
8. מבחן נספח V-APC-PI
תאים מכל קבוצה נקצרו, נשטפו פעמיים עם מי מלח מקוררים מראש (PBS), וצנטריפוגה ב-300 × גרם למשך 5 דקות ב-4 מעלות צלזיוס. הגלולה הושעתה מחדש ב-300 מיקרוליטר של 1× מאגר מחייב בצפיפות של כ-1 ×-106 תאים/מ"ל. נוסף נספח V-APC (5 מיקרוליטר), והדגימות הודגרו במשך 15 דקות בטמפרטורת החדר בחושך. מיד לפני ציטומטריית הזרימה, 5 מיקרוליטר של פרופידיום יודיד נוספו ל -200 מיקרוליטר של תרחיף התא והודגרו למשך 5 דקות בטמפרטורת החדר. הדגימות נותחו על ציטומטר זרימה באמצעות ערוצים מתאימים (APC ו-PI), והנתונים עובדו עם אסטרטגיות שער סטנדרטיות כדי להבחין בין תאים חיים, אפופטוטיים מוקדמים, אפופטוטיים מאוחרים ונמקים.
9. פרופיל qRT-PCR
סך ה-RNA הופק בשיטת פנול-כלורופורם, והריכוז והטוהר נקבעו על ידי ספקטרופוטומטריה אולטרה סגולה. עבור שעתוק הפוך, נעשה שימוש ב-1 מיקרוגרם של RNA כולל בתגובה של 20 מיקרוליטר עם תערובת מאסטר של שעתוק הפוך על פי פרוטוקול היצרן. PCR כמותי בוצע בתגובות של 20 מיקרוליטר המכילות 2 מיקרוליטר של cDNA, 10 מיקרוליטר של תערובת מאסטר SYBR Green ו-0.4 מיקרומטר מכל פריימר. התגובות הופעלו במערכת PCR בזמן אמת עם תוכנית הרכיבה הבאה: 95 מעלות צלזיוס למשך דקה אחת, ואחריה 40 מחזורים של 95 מעלות צלזיוס למשך 15 שניות ו-63 מעלות צלזיוס למשך 25 שניות, עם רכישת פלואורסצנטיות בסוף כל מחזור. ניתוח עקומת התכה בוצע מ-55 מעלות צלזיוס עד 95 מעלות צלזיוס כדי לאמת את ספציפיות המוצר. כל דגימה נותחה בשלוש עותקים, והביטוי היחסי כומת בשיטת 2-ΔΔCt. U6 שימש כגן הייחוס לכימות מיקרו-RNA, ו-β-אקטין שימש לנורמליזציה של mRNA.
רצפי הפריימר היו כדלקמן: U6: קדימה 5'-CTCGCTTCGGCACACA-3', הפוך 5'-AACGCTTCACGAATTTGCGT-3'; miR-22: קדימה 5'-GCCTGAAGCTGCCAGTTGA-3', אחורה 5'-GTGCAGGGTCGAGGT-3'; Wnt1: קדימה 5'-CGATGGTGGGGTTTATTGAAC-3', אחורה 5'-CCGGATTTTGGCGTATCAGAC-3'; β-actin: קדימה 5'-AGTGGACGTGGACATCCGCAAAG-3', הפוך 5'-ATCCACATCTGCTGGAAGGTGGAC-3'. נתוני ההגברה עובדו באמצעות תוכנת המערכת. כל הפריימרים הושגו מספק מסחרי.
10. כתם מערבי
חלבונים הופקו מתאים או רקמות מתורבתים באמצעות מאגר ליזה המכיל מעכבי פרוטאז, וריכוזי החלבון נקבעו בשיטת החומצה הביצינכונינית. כמויות שוות של חלבון (40 מיקרוגרם לנתיב) הופרדו על ידי 10% SDS-PAGE במתח קבוע (80 וולט לערימת ג'ל ו-120 וולט לפירוק ג'ל) והועברו לממברנות פוליווינילידן דיפלואוריד באמצעות מערכת העברה רטובה ב-100 וולט למשך 90 דקות. הממברנות נחסמו בחלב דל שומן 5% שהוכן בתמיסת מלח עם 0.1% Tween-20 (TBST) למשך שעה בטמפרטורת החדר. נוגדנים ראשוניים נגד Wnt1, β-catenin ו-β-actin דוללו ב-1:1000 ב-TBST שהכיל חלב דל שומן 1% והודגרו עם הממברנות למשך הלילה ב-4 מעלות צלזיוס. לאחר שטיפה שלוש פעמים עם TBST (10 דקות כל אחת), הממברנות הודגרו עם נוגדן משני מצומד חזרת פרוקסידאז (דילול 1:5000) למשך שעה אחת בטמפרטורת החדר. לאחר שלוש שטיפות נוספות עם TBST, רצועות החלבון הודגמו באמצעות מגיב זיהוי כימילומינסנציה משופר, והאותות נלכדו באמצעות מערכת הדמיה דיגיטלית. עוצמות הלהקה כומתו באמצעות תוכנת ImageJ.
11. בדיקת לוציפראז
נבנו פלסמיד מדווח מסוג פרא (Wnt1-WT) המכיל את ה-3′UTR של Wnt1 עם אתרי קשירה חזויים של miR-22 ומדווח מוטנטי (Wnt1-MUT) עם אתרי קשירה משובשים. תאי רטינובלסטומה אנושיים נזרעו בצלחות של 24 בארות בצפיפות של 1 × 10⁵ תאים לבאר והועברו במשותף עם פלסמידים מדווחים Wnt1-WT או Wnt1-MUT יחד עם חיקוי miR-22 או בקרה שלילית באמצעות מגיב טרנספקציה מבוסס שומנים. עבור כל באר נעשה שימוש ב-500 ננוגרם של פלסמיד מדווח ו-50 ננומטר של חיקוי או ביקורת של miRNA. לאחר 48 שעות של דגירה ב-37 מעלות צלזיוס עם 5% CO2, התאים עברו ליזה ב-100 מיקרוליטר של מאגר ליזה פסיבי. פעילויות Firefly ו-Renilla luciferase נמדדו ברצף באמצעות מערכת בדיקת מדווח לוציפראז כפולה על פי פרוטוקול היצרן. פעילות לוציפראז גחלילית נורמלה לפעילות לוציפראז רנילה כדי לשלוט ביעילות הטרנספקציה. כל מצב נבדק בבארות משולשות וחזר על עצמו בשלושה שכפולים ביולוגיים בלתי תלויים.
12. ניתוח סטטיסטי
כל הנתונים מוצגים כממוצע ± סטיית תקן (SD) מלפחות שלושה שכפולים ביולוגיים בלתי תלויים. ניתוחים סטטיסטיים בוצעו באמצעות תוכנות סטטיסטיות. השוואות בין מספר קבוצות נערכו על ידי ניתוח שונות חד כיווני (ANOVA) ואחריו מבחן הפוסט הוק של טוקי. ערך p של <0.05 נחשב מובהק סטטיסטית.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
השפעות אנטי-פרוליפרטיביות ואנטי-פולשניות תלויות מינון של כורכומין על תאי רטינובלסטומה אנושיים, מלוות בנטרול מסלול Wnt/β-catenin
תאי RB אנושיים טופלו במינונים שונים של כורכומין במשך תקופה של 24 שעות. הממצאים חשפו ירידה תלוית מינון בכדאיות התאים ובפלישה, יחד עם עלייה באפופטוזיס. באופן ספציפי, כאשר ריכוז הכורכומין עלה מ-10 ל-50 מיקרומטר, התפשטות התאים פחתה בהדרגה הן בשורות התאים SO-Rb50 והן בשורות התאים WERI-Rb-1 בהשוואה לתאים שלא טופלו (איור 1A). ה-IC50 של כורכומין נמצא כ-3...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
כורכומין, פוליפנול המופק מקני שורש Curcuma longa, ידוע בתכונותיו האנטי דלקתיות, האנטי-אנגיוגניות, נוגדות השגשוג ונוגדות החמצון23,24. בנוסף, יש לו תכונות אנטי-גידוליות, במיוחד יכולתו לגרום לאפופטוזיס בתאים ממאירים25. למרות שמחקרים קודמים הדגישו את ההשפעות מדכאות הגדילה של כורכומין על תאי RB 22,26,27, עדיין קיימת הבנה מוגבלת של המנגנונים המדויקים העומדים בבסיס הפעילות האנטי-גידולית של כורכומין בטיפול ב-RB.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
למחברים אין ניגודי אינטרסים להצהיר עליהם.
תודות
הקרן הלאומית למדעי הטבע של סין (82271218); קרן המדע של בית החולים לעיניים בטיאנג'ין (פרויקט כללי ykyb1908).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| ערכת צביעה כפולה של Annexin V-APC/PI | סולארביו | CA1020 | הערכה כמותית של אפופטוזיס בתאי RB באמצעות זרימה ציטומטרית |
| ערכת בדיקת CCK-8 | ביוטיים | C0038 | למדוד את הספיגה ב-490 ננומטר להערכת יכולת שגשוג התאים |
| אינקובטור CO2 | אפנדורף | לשמור על תנאי גידול אופטימליים (37 מעלות; C, 5% CO<תת>2, ולחות רוויה) להתפשטות תאי RB | |
| כורכומין | סיגמא | C1386 | חקירת ההשפעות האנטי-גידוליות של כורכומין על רטינובלסטומה (RB) |
| מצע כימילומינסנט ECL | ביוס | C05-07004 | דמיין רצועות חלבון בניתוח כתמים מערביים |
| סרום בקר עוברי (FBS) | VivaCell | C04001-500 C04002-500 | תרבית תאים |
| ציטומטריית זרימה | בקמן קולטר | גאליוס | לנתח כמותית את קצב האפופטוזיס של התאים |
| תוכנת ImageJ | מכוני הבריאות הלאומיים | גרסה 6 | ניתוח פס כתמים מערבי, הערכת רמות ביטוי חלבון |
| מיקרוסקופ הפוך | אולימפוס | CKX53 | התבוננות וספירת תאים פולשניים פי 400; הגדלה במבחן Transwell |
| ליפופקטמין 3000 | Invitrogen | L3000015 | טרנספקציה של תאים |
| קורא מיקרופלייט | תרמו | K3 | כימות מבחן אימונוסורבנט מקושר לאנזים (ELISA) |
| miR-22 מחקה את Lentivirus | Hanheng ביוטכנולוגיה | has-miR-22 | להקים קו תאים יציב לניסויים בבעלי חיים |
| Multiplex מערכת PCR בזמן אמת | ביו-ראד | CFX384 | לבצע RT-PCR כמותי (qRT-PCR) לניתוח ביטוי גנים מדויק |
| פניצילין-סטרפטומיצין (PS) | אבקין | BMC1030 | נוסף למצע תרבית תאים למניעת זיהום חיידקי |
| ערכת מיצוי חלבון | סולארביו | BC3640-50T | בידוד חלבונים מדגימות תאים ורקמות |
| וקטור psiCHECK-2 | פרומגה | JR20110328 | בנה פלסמידים מדווחים Wnt1-WT (סוג פראי) ו-Wnt1-MUT (מוטנטי) לחקירת האינטראקציה בין miR-22 ל-Wnt1 3'UTR |
| קרום PVDF | מרק | ISEQ00010 | כתמי חלבון |
| נוגדן משני IgG של ארנב | טכנולוגיות איתות תאים | 14708 | זיהוי כתמים מערביים על ידי קשירה לנוגדנים הראשוניים |
| תוכנה סטטיסטית SPSS | יבמ | SPSS 20.0 | לבצע ניתוח סטטיסטי על נתוני הניסוי |
| SuperScript III ערכת סופרמיקס לסינתזה של גדיל ראשון | Invitrogen | 11752-050 | שעתוק הפוך של RNA ל-cDNA לניתוח RT-PCR לאחר מכן |
| ערכת SYBR Premix Ex Taq II | TaKaRa ביו | RR820A | כדי ש-RT-PCR יזהה כמותית את הביטוי של Wnt1, β-actin וגני מטרה אחרים |
| מגיב טריזול | Invitrogen | 12183-555 | מיצוי RNA מדגימות תאים ורקמות |
| ספקטרופוטומטר UV | בקמן | DU800 | לקבוע את הריכוז והטוהר של דגימות RNA |
| נוגדן Wnt1 | אבקם | ab15251 | ניתוח כתמים מערביים לאיתור ביטוי חלבון Wnt1 |
| &בטא;-נוגדן אקטין | אבקם | אילן אלכסנדר | משמש כהתייחסות פנימית לנורמליזציה של העמסת חלבון בניתוח כתמים מערביים |
| &בטא;-נוגדן קטנין | טכנולוגיות איתות תאים | 37447 | ניתוח כתמים מערביים לאיתור ביטוי חלבון &בטא;-catenin |
מקורות
- Dimaras, H., et al. Retinoblastoma. Nat Rev Dis Primers. 1, 15021(2015).
- Pandey, A. N. Retinoblastoma: An overview. Saudi J Ophthalmol. 28 (4), 310-315 (2014).
- Rushlow, D., et al. Detection of mosaic RB1 mutations in families with retinoblastoma. Hum Mutat. 30 (5), 842-851 (2009).
- Yin, W., Gao, F., Zhang, S. MicroRNA-34a inhibits the proliferation and promotes the chemosensitivity of retinoblastoma cells by downregulating Notch1 expression. Mol Med Rep. 22 (2), 1613-1620 (2020).
- Liu, M., Wang, S. M., Jiang, Z. X., Lauren, H., Tao, L. M. Effects of miR-22 on viability, migration, invasion and apoptosis in retinoblastoma Y79 cells by targeting high-mobility group box 1. Int J Ophthalmol. 11 (10), 1600-1607 (2018).
- Guo, S., et al. miR-22 inhibits osteosarcoma cell proliferation and migration by targeting HMGB1 and inhibiting HMGB1-mediated autophagy. Tumour Biol. 35 (7), 7025-7034 (2014).
- Poliseno, L., et al. Identification of the miR-106b~25 microRNA cluster as a proto-oncogenic PTEN-targeting intron that cooperates with its host gene MCM7 in transformation. Sci Signal. 3 (117), ra29(2010).
- Zhang, J., et al. microRNA-22, downregulated in hepatocellular carcinoma and correlated with prognosis, suppresses cell proliferation and tumourigenicity. Br J Cancer. 103 (8), 1215-1220 (2010).
- Chen, H., et al. miR-22 inhibits the proliferation, motility, and invasion of human glioblastoma cells by directly targeting SIRT1. Tumour Biol. 37 (5), 6761-6768 (2016).
- Martin, J., et al. Differentially expressed miRNAs in retinoblastoma. Gene. 512 (2), 294-299 (2013).
- Hewlings, S. J., Kalman, D. S. Curcumin: A review of its effects on human health. Foods. 6 (10), 92(2017).
- He, Y., et al. Curcumin, inflammation, and chronic diseases: how are they linked. Molecules. 20 (5), 9183-9213 (2015).
- Anand, P., Sundaram, C., Jhurani, S., Kunnumakkara, A. B., Aggarwal, B. B. Curcumin and cancer: an "old-age" disease with an "age-old" solution. Cancer Lett. 267 (1), 133-164 (2008).
- Khadrawy, Y. A., Hosny, E. N., Eldein Mohamed, H. S. Assessment of the neuroprotective effect of green synthesized iron oxide nanoparticles capped with curcumin against a rat model of Parkinson's disease. Iran J Basic Med Sci. 27 (1), 81-89 (2024).
- Mu, Y. T., et al. Curcumin suppressed proliferation and migration of human retinoblastoma cells through modulating NF-κB pathway. Int Ophthalmol. 40 (10), 2435-2440 (2020).
- Li, Y., Sun, W., Han, N., Zou, Y., Yin, D. Curcumin inhibits proliferation, migration, invasion and promotes apoptosis of retinoblastoma cell lines through modulation of miR-99a and JAK/STAT pathway. BMC Cancer. 18 (1), 1230(2018).
- Sreenivasan, S., Ravichandran, S., Vetrivel, U., Krishnakumar, S. In vitro and in silico studies on inhibitory effects of curcumin on multi drug resistance associated protein (MRP1) in retinoblastoma cells. Bioinformation. 8 (1), 13-19 (2012).
- Zhu, J., Qu, J., Fan, Y., Zhang, R., Wang, X. Curcumin inhibits invasion and epithelial-mesenchymal transition in hepatocellular carcinoma cells by regulating TET1/Wnt/β-catenin signal axis. Bull Exp Biol Med. 173 (6), 770-774 (2022).
- Lu, Y., Zhang, R., Zhang, X., Zhang, B., Yao, Q. Curcumin may reverse 5-fluorouracil resistance on colonic cancer cells by regulating TET1-NKD-Wnt signal pathway to inhibit the EMT progress. Biomed Pharmacother. 129, 110381(2020).
- Sreenivasan, S., Thirumalai, K., Danda, R., Krishnakumar, S. Effect of curcumin on miRNA expression in human Y79 retinoblastoma cells. Curr Eye Res. 37 (5), 421-428 (2012).
- Yuan, S., et al. miR-22 promotes stem cell traits via activating Wnt/β-catenin signaling in cutaneous squamous cell carcinoma. Oncogene. 40 (39), 5799-5813 (2021).
- Sreenivasan, S., Thirumalai, K., Krishnakumar, S. Expression profile of genes regulated by curcumin in Y79 retinoblastoma cells. Nutr Cancer. 64 (4), 607-616 (2012).
- Park, W., Amin, A. R., Chen, Z. G., Shin, D. M. New perspectives of curcumin in cancer prevention. Cancer Prev Res (Phila). 6 (5), 387-400 (2013).
- Gupta, S. C., Patchva, S., Aggarwal, B. B. Therapeutic roles of curcumin: Lessons learned from clinical trials. AAPS J. 15 (1), 195-218 (2013).
- Reuter, S., Eifes, S., Dicato, M., Aggarwal, B. B., Diederich, M. Modulation of anti-apoptotic and survival pathways by curcumin as a strategy to induce apoptosis in cancer cells. Biochem Pharmacol. 76 (11), 1340-1351 (2008).
- Yu, X., et al. Curcumin exerts antitumor effects in retinoblastoma cells by regulating the JNK and p38 MAPK pathways. Int J Mol Med. 38 (3), 861-868 (2016).
- Sreenivasan, S., Krishnakumar, S. Synergistic effect of curcumin in combination with anticancer agents in human retinoblastoma cancer cell lines. Curr Eye Res. 40 (11), 1153-1165 (2015).
- Jiao, D. M., et al. Exploration of inhibitory mechanisms of curcumin in lung cancer metastasis using a miRNA-transcription factor-target gene network. PLoS One. 12 (2), e0172470(2017).
- Lu, Y., et al. Curcumin increases the sensitivity of Paclitaxel-resistant NSCLC cells to Paclitaxel through microRNA-30c-mediated MTA1 reduction. Tumour Biol. 39 (4), 1010428317698353(2017).
- Suresh, R., Ali, S., Ahmad, A., Philip, P. A., Sarkar, F. H. The role of cancer stem cells in recurrent and drug-resistant lung cancer. Adv Exp Med Biol. 890, 57-74 (2016).
- Yang, Z., et al. Retinoblastoma-binding protein 5 regulates H3K4 methylation modification to inhibit the proliferation of melanoma cells by inactivating the Wnt/β-catenin and epithelial-mesenchymal transition pathways. J Oncol. 2023, 5093941(2023).
- Bai, S., Shao, J., Bi, C., Li, F. β-asarone attenuates the proliferation, migration and enhances apoptosis of retinoblastoma through Wnt/β-catenin signaling pathway. Int Ophthalmol. 43 (5), 1687-1699 (2023).
- Yang, M., Li, Y., Wei, W. MicroRNA-188-5p promotes epithelial-mesenchymal transition by targeting ID4 through Wnt/β-catenin signaling in retinoblastoma. Onco Targets Ther. 12, 10251-10262 (2019).
- Shang, S., Hua, F., Hu, Z. W. The regulation of β-catenin activity and function in cancer: Therapeutic opportunities. Oncotarget. 8 (20), 33972-33989 (2017).
- Lu, Y., Wei, C., Xi, Z. Curcumin suppresses proliferation and invasion in non-small cell lung cancer by modulation of MTA1-mediated Wnt/β-catenin pathway. In Vitro Cell Dev Biol Anim. 50 (9), 840-850 (2014).
- Hao, J., et al. Curcumin suppresses colorectal tumorigenesis via the Wnt/β-catenin signaling pathway by downregulating Axin2. Oncol Lett. 21 (3), 186(2021).
- Shao, J., et al. LincROR mediates the suppressive effects of curcumin on hepatocellular carcinoma through inactivating Wnt/β-catenin signaling. Front Pharmacol. 11, 847(2020).
- Gao, M., Cui, Z., Zhao, D., Zhang, S., Cai, Q. MicroRNA-9 inhibits proliferation and progression in retinoblastoma cells by targeting PTEN. Genes Genomics. 43 (9), 1023-1033 (2021).
- Xu, L., Zhu, S., Tang, A., Liu, W. LncRNA MBLN1-AS1 inhibits the progression of retinoblastoma through targeting miR-338-5p-Wnt/β-catenin signaling pathway. Inflamm Res. 70 (2), 217-227 (2021).
- Fu, C., Wang, S., Jin, L., Zhang, M., Li, M. CircTET1 inhibits retinoblastoma progression via targeting miR-492 and miR-494-3p through Wnt/β-catenin signaling pathway. Curr Eye Res. 46 (7), 978-987 (2021).
- Bi, L. L., Han, F., Zhang, X. M., Li, Y. Y. LncRNA MT1JP acts as a tumor inhibitor via reciprocally regulating Wnt/β-catenin pathway in retinoblastoma. Eur Rev Med Pharmacol Sci. 22 (13), 4204-4214 (2018).
- Lyv, X., et al. Long noncoding RNA ZFPM2-AS1 knockdown restrains the development of retinoblastoma by modulating the MicroRNA-515/HOXA1/Wnt/β-catenin axis. Invest Ophthalmol Vis Sci. 61 (6), 41(2020).
- He, H., Qin, M. Long non-coding RNA LEF1-AS1 is involved in the progression of retinoblastoma through regulating the Wnt/β-catenin pathway. Clin Exp Pharmacol Physiol. 47 (5), 886-891 (2020).
- Yu, F., Pang, G., Zhao, G. RETRACTED: ANRIL acts as onco-lncRNA by regulation of microRNA-24/c-Myc, MEK/ERK and Wnt/β-catenin pathway in retinoblastoma. Int J Biol Macromol. 128, 583-592 (2019).
- Cruickshank, B. M., et al. LncRNA PART1 promotes proliferation and migration, is associated with cancer stem cells, and alters the miRNA landscape in triple-negative breast cancer. Cancers (Basel). 13 (11), 2644(2021).
- Rysz, J., Konecki, T., Franczyk, B., Ławiński, J., Gluba-Brzózka, A. The role of long noncoding RNA (lncRNAs) biomarkers in renal cell carcinoma. Int J Mol Sci. 24 (1), 643(2022).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.