מאמר זה מציג פרוטוקול לגידול נוירוני קולטני ריח של עש, המאפשר הישרדות והבחנה ארוכת טווח. גישה זו מציעה אלטרנטיבה להקלטות מאתגרות מאוד במקום, באמצעות דיסוציאציה אנזימטית ומכנית עם טכניקת תרבות עמוד תלוי, המאפשרת מחקרים פונקציונליים כמו הקלטות פאץ'-קלאמפ.
במאמר זה
סיכום
תקציר
חרקים תלויים באופן קריטי ביכולת הריח שלהם עבור התנהגויות רבות הקשורות להזדווגות, האכלה ואינטראקציות חברתיות. הם פיתחו נוירוני קולטני ריח רגישים מאוד (ORNs). למרות שהקלטות חוץ-תאיות בשטח משמשות בדרך כלל לניתוח פרופיל התגובה, תכונות הקידוד והפיזיולוגיה של תאים אלו, ניתוח מפורט של מסלולי העברת האותות שלהם דורש הקלטות מסוג patch-clamp. כדי להקל על השימוש בטכניקה אלקטרופיזיולוגית זו ולשלוט היטב בהרכב תמיסות ORN תוך-תאיות וחוץ-תאיות, מאמר זה מתאר פרוטוקול לגידול ORNs של חרקים. מכיוון ש-ORNs של חרקים עטופים בצפיפות בתאי עזר, מה שמונע כל התנתקות חריפה של ORNs בוגרים וגישה ישירה לממברנותיהם, פרוטוקול זה מתאר את ניתוק תאי האנטנות מגולמי העש, לפני התמיינות ה-ORNs. אנטנות מתפתחות מופרדות אנזימטית ומכאנית ואז מעובדות הפוכה באמצעות 'טכניקת עמוד תלוי' במדיום מותנה התומך בהבדלה ובהישרדות של ה-ORNs למשך מספר שבועות. ORNs המגודלים בשיטה זו מתאימים לבדיקות פונקציונליות כגון הקלטות פאץ'-קלאמפ.
מבוא
חרקים מסתמכים רבות על הריח כדי לנווט בסביבתם, לאתר מקורות מזון, לזהות בני זוג ולהימנע מטורפים 1,2. מערכת הריח שלהם יעילה להפליא ומכוונת בקפידה, ומאפשרת זיהוי מגוון רחב של רמזים כימיים נדיפים עם רגישות וספציפיות גבוהים3. הריחות מזוהים בעיקר על ידי נוירוני קולטני הריח (ORNs), המאוחסנים בסנסילה הממוקמת על האנטנות, האיברים הריחניים העיקריים, וכן על הפישוטים העליונים, המשמשים כמבנים ריחניים משניים בדיפטרה כמו יתושים ודרוזופילה4.
כדי לחקור את המנגנונים המולקולריים שמאחורי העברת אותות הריח, גישה אלקטרופיזיולוגית ישירה ל-ORNs בודדים היא חיונית. הקלטת פאץ'-קלאמפ, טכניקת תקן זהב בנוירופיזיולוגיה, מאפשרת אפיון פונקציונלי מפורט של ערוצי היונים, הקולטנים ונתיבי האיתות. הקלטות טלאי במקום, מקלות ORN של חרקים, הן אפשריות אך מאתגרות טכנית בשל הגודל הקטן, האריזה הצפופה בתוך תאי העזר והעטיפה הקוטיקולרית של נוירונים אלו. קשיים אלו נפתרו על ידי תיקון דנדריטים חיצוניים שהוצאו מהעש הענק Antheraea polyphemus5 או על ידי תיקון ORNs מהכנה חצי-שלמה או פרוסת אנטנה בדרוזופילה 6,7. למרות שהקלטות בשטח מאפשרות הקלטה של נוירונים הממוינים באופן רגיל, גישות אלו מציבות קשיים טכניים משמעותיים, המדגישות את הצורך בגישות חלופיות שמספקות תנאים ניסיוניים נגישים יותר.
מאמר זה מתאר פרוטוקול חזק לגידול ORNs מאנטנות עש. הפרוטוקול נראה כרלוונטי למגוון רחב של פרפרים, אף על פי שטרם נבדק על קבוצות חרקים אחרות. השיטה מאפשרת תחזוקה וצמיחה של ORNs במבחנה, ובכך מאפשרת גישה ישירה לתאים אלו למחקרי פאץ'-קלאמפ 8,9,10 וכן למחקרים פרמקולוגיים ודימותיים. מערכת תרביות זו מספקת פלטפורמה חשובה לניתוח פונקציונלי של מסלולי ההעברה הריחית והרכיבים המולקולריים המעורבים, תוך עקיפת מגבלות רבות הקשורות להקלטות במקום.
פרוטוקול
אישור אתי והצהרות ציות אינם נדרשים למחקרים הכוללים חרקים. תרביות ראשוניות של ORNs של חרקים תוארו על עש נץ הטבק Manduca sexta (פרפרים, Sphingidae)11, דבורת הדבש Apis mellifera12, ועש הכרוב Mamestra brassicae (Lepidoptera, Noctuidae)13. הפרוטוקולים המתוארים מראים דמיון מסוים (כריתה משלב הגולם) והבדלים (מדיום תרבית, משטח גדילה). הפרוטוקול המתואר כאן שימש בהצלחה ללא שינוי לגידול ORNs ממספר מיני עש, כגון M. brassicae, Spodoptera littoralis, Bombyx mori ו-Agrotis ipsilon. כל השלבים מתבצעים מתחת למכסה הזרימה הלמינרי (קטעים 2 עד 8 מתבצעים באופן אספטי).
1. חרקים
- הזחלים האחוריים של S. littoralis (לפרדיפטרה: Noctuidae) בתזונה מלאכותית ושומרים עליהם בטמפרטורה של 22-24 מעלות צלזיוס, לחות יחסית של 60-70%, ותחת מחזור אור-חושך של 16:8 שעות כפי שתוארקודם 14.
- מפרידים בין זכרים לנקבות בשלב הגולם. לאחר היציאה, יש לשמור את הזכרים הבוגרים בנפרד מהנקבות בקופסאות פלסטיק ולספק להם גישה חופשית לתמיסת סוכרוז של 20%.
- אספו גולמים חדשים מדי יום ושמרו עליהם בטמפרטורה של 22 מעלות צלזיוס. בתנאים אלו, הגולם נמשך 14-16 ימים. בצע ניסויים עם זכרים או נקבות.
2. הכנת מדיום תרבות החסד המותנה
הערה: המדיום של הגרייס המשמש לגידול ORNs של עש מותנה על קו תאים מסוג מנדוקה ( MRRL-CH115; קו תאים זה זמין לפי בקשה). תת-תרבית של תאי MRRL-CH1 כל 3 שבועות (כ-80% מזל) בטמפרטורה של 20 מעלות צלזיוס באוויר רגיל. אל תאפשר לתאים לעבור את ההתאמה של 90%, שכן הדבר מוביל לניתוק התאים ולעלייה במוות התאים. בכל קטע, בצע את השלבים הבאים.
- נתק בעדינות תאים דביקים מהמשטח התחתון של בקבוק אחד באמצעות פיפטה של 10 מ"ל.
- פזרו 1.5 מ"ל מהמתנה התאית ב-4 בקבוקים והוסיפו 6.2 מ"ל מדיום של גרייס בתוספת סרום בקר עוברי (FBS) של 10% בכל בקבוקון.
- יומיים לאחר מעבר התא, אם אין זיהום בבקבוקים המוכנים האחרונים, אסוף את מדיום התרבית משלושת הבקבוקים הנותרים של המעבר הקודם. סנן (0.2 מיקרון) ואחסן את המדיום המותאם של גרייס בטמפרטורה של 5 מעלות צלזיוס. תשתמש בזה עד 6 חודשים.
3. הכנת פפיין
הערה: יש לאחסן את הפפאן באליקוטים מרוכזים (100 מ"ל ב-10 מ"ג/מ"ל) ובטמפרטורה של -80 מעלות צלזיוס כדי למזער את אובדן הפעילות האנזימטית לאורך זמן. לכן, יש להכין אליקווטים של ממסי פפאן בנפרד. אתילנדיאמין-טטראצטית (EDTA) ו-L-ציסטאין מתווספים לפפאן16 הפעיל. כאשר מעורבבים עם פפיין, הריכוז הסופי שלהם הוא 0.5 מ"מ EDTA, 1 מ"מ ציסטאין ו-1 מ"ג/מ"ל פפיין (~10 U/mL).
- Papain aliquots: מדלל פפיין (25 מ"ג) ב-2.5 מ"ל של תמיסת מלח מאוזנת סטרילית של Hanks (HBSS) עם 20% גליצרול. שמור על זה ב-100 מיקרוליטר אליקוט בטמפרטורה של -80 מעלות צלזיוס.
- ממס פפיין: פיפט 27 מ"ל מניטול וכיוון את לחץ האוסמוטי שלו ל-380 mOsmol/L עם מניטול. הוסף 5.6 מ"ג EDTA ו-5.3 מ"ג L-ציסטאין. כוון את ה-pH ל-6.7. סטריליזציה באמצעות פילטרים בקוטר 0.2 מיקרון עם חיבור נמוך. שמור על זה ב-900 מיקרוליטר אליקוות בטמפרטורה של -20 מעלות צלזיוס.
4. הכנת מדיה תרבותית
הערה: כל המדיה סטרילית. העיקורים מתבצעים באמצעות מסנני סטריל של 0.2 מיקרון.
- 3+2 בינוני:
- הוסיפו 3 חלקים מדיום לייבוביץ' (16.4 מ"ל), 2 חלקים מדיום גרייס (11 מ"ל), ו-2% מפניצילין-סטרפטומיצין (0.6 מ"ל) בצינור של 30 מ"ל. כוון את לחץ האוסמוטי ל-370 mOsmol/L (כ-150 מ"ג מניטול) ואת ה-pH ל-6.7 (NaOH 1 M).
- מ-28 מ"ל של מדיום 3+2 שנוצר, סנן והעבר 5 מ"ל לצינור של 7 מ"ל. הוסיפו כמה גבישי פנילתיורה (כ-1-2 מ"ג) ל-23 מ"ל הנותרים של המדיום 3+2, ואז עקרו והעבירו 1.5 מ"ל לצינור של 7 מ"ל (צינור #1) ול-6 צלחות פטרי ששימשו מאוחר יותר לניתוח גולמים ולכן נקראים להלן 'צלחות חיתוך'.
הערה: פנילתיאוראה מעכב את פעילות האוקסידאז 17,18,19 שגורמת להשחרת רקמות אנטנות.
- 3+2 בינוני מעודכן:
- הוסיפו 67 מ"ג מניטול לצינור של 30 מ"ל ו-9 מ"ל מדיום של לייבוביץ' וסינון (0.2 מיקרון). ואז להוסיף 2 חלקים מהמדיום של גרייס המותנית.
- כוונן את כמות המניטול בהתאם ללחץ האוסמוטי של המדיה של לייבוביץ' וגרייס כך שלחץ האוסמוטי של התווך המותאם 3+2 יהיה 370 ± 15 mOsmol/L (צינור #2).
- מדיום HBSS: הוסף 12 מ"ל HBSS ו-0.25 מ"ל פניצילין-סטרפטומיצין. כוונן את לחץ האוסמוטי ל-370 mOsmol/L (כ-216 מ"ג מניטול), pH ל-6.7 (HCl 1 M), ועקר (צינור #3).
- מדיום HBSS-EGTA: הוסף 2 מ"ג אתילן גליקול-ביס (β-אמינואתיל אתר)-N,N,N′,N′-חומצה טטראצטית (EGTA) ו-2 מ"ל של תמיסת HBSS שהוכנה מראש לצינור בנפח 7 מ"ל. כוונן את ה-pH ל-6.7 (NaOH 1 M) וחטא (צינור #4).
5. נתיחה של גולמים (איור 1)
הערה: נקה מלקחיים מדי פעם עם 70% אתנול ונייר סופג ואז להבעיר אותם במהירות. ניתוח על רקע שחור מקל על המחשה של האנטנה.
- שטוף גולמים בני 2.5 עד 3 ימים מתחת למים בברז ואז במים מזוקקים.
- הכנס 20-25 גולמים בצלחת פטרי מתחת למכסה זרימה למינרי.
- מתחת למכסה המנוע, להבה 2 בקבוקים. מלאו אחד ב-70% אתנול ואת השני במים מזוקקים סטריליים (אוטוקלביים).
- קח 4 גולמים עם מלקחיים וטבול אותם כ-10 שניות באתנול 70% ואז במים מזוקקים סטריליים והעבר אותם למכסה של צלחת פטרי לניתוח.
- חתוך את הקוטיקולה סביב כל אנטנה עם מלקחיים להבהבים והעבר את זוג האנטנות לצלחת חיתוך מלאה במדיום 3+2 (איור 1A,B).
- במדיום 3+2, יש להסיר את כל הרקמות המכסות את הצינורות שבהם מתרחשת התפתחות האנטנה כך שרק האנטנה והקוטיקולה של הגולם יישארו (איור 1C), ואז להעביר את האנטנות (איור 1D) לצלחת חדשה המלאה במדיום 3+2.
הערה: איור 1E-J מציג את התמונות של תהליך הניתוח. - פתח את הצינור שבו האנטנה מתפתחת עם מלקחיים עדינים והסר בעדינות את האנטנה. הסרת כל אנטנה בחתיכה אחת מקלה על השטיפות הבאות (שלבים 7.1-7.9), שכן הן נוטות יותר לשקוע לתחתית הצינור.
- באמצעות פיפט פסטר סטרילי, שואבים מדיום מהצלחת והוצאו אותו חזרה לתערת כדי להרטיב את פני השטח הפנימיים של הפיפטה. זה מסייע להפחית את הנטייה של האנטנות להידבק לזכוכית בתוך הפיפטה. לאחר מכן, העבר את האנטנות המנותקות עם הפיפטה לצינור בנפח 7 מ"ל מלא ב-1.5 מ"ל של 3+2 (צינור #1).
- חזור על השלבים 5.4 - 5.8 עבור 20 גולמים ואסוף 20 זוגות אנטנות בצינור #1.
6. הכנת מנות פטרי
הערה: תאי אנטנות מגודלים באמצעות טכניקת עמוד תלייה20. זה דורש הכנת כלי פטרי. אפשר לעשות זאת מראש.
- חתכו חתיכות זכוכית (6-7 מ"מ × 6-7 מ"מ) מסלייד. שמור אותם באתנול.
- מתחת למכסה המנוע, יש להבעיר את חלקי הזכוכית, לטבול אותם מיד בז'ל פטרול סטרילי (אוטוקלב) (למשל, וזלין), ולמקם אותם בצלחות פטרי כפי שמוצג באיור 2A.
7. דיסוציאציה וציפוי תאים
הערה: להחלפות המדיה המתוארות להלן, חשוב להסיר כמה שיותר מדיום באמצעות פיפטת פסטר סטרילית, מבלי להשליך שום רקמת אנטנה. הזרוע של מקור אור קר מסייעת להמחיש בצורה ברורה יותר את האנטנות הצפות במדיום. דיסוציאציה אנזימטית וטריטורציה מכנית מתבצעות ברצף ולא בו-זמנית, כדי להימנע מצנטריפוגה של תאי האנטנות להסרת פפיין.
- שים אליקו פפיין ואליקו ממס פפיין בטמפרטורת החדר.
- החלף את המדיום 3+2 בצינור #1 באנטנה המנותקת ב-1 מ"ל HBSS (מצינור #3) והמתין 10 דקות.
- החלף את ה-HBSS Medium ב-1 מ"ל HBSS-EGTA (מצינור #4) והמתין 5 דקות.
- החלף את ה-HBSS-EGTA Medium ב-1 מ"ל HBSS והמתין 5 דקות.
- החלף את ה-HBSS Medium ב-1 מ"ל HBSS והמתין 5 דקות.
- העבר את ממס הפפיין (900 מיקרוליטר) לאליקו הפפיין (100 מיקרוליטר). כוון את ה-pH של דילול הפפיין שנוצר (0.2-0.5 מיקרולטר HCl 1M) אם צבעו אינו זהה לצהוב של תמיסת 3+2. אל תמדד את ה-pH, כי זה יזהם את התמיסה.
- החלף את המדיום של HBSS ב-1 מ"ל של תמיסת הפפיין המדוללת הטרייה ודגר 10-15 דקות. בצע עיכול אנזימטי בטמפרטורת החדר.
- החלף את תמיסת הפפיין ב-1 מ"ל HBSS + 50 מיקרול FBS והמתין 5 דקות כדי לנטרל את פעילות הפפיין.
- שטוף פעמיים עם 1 מ"ל HBSS למשך 5 דקות.
- החלף את HBSS medium ב-1 מ"ל של 3+2 בינוני.
- הבריק באש את קצה פיפטת פסטר עם מבער בונזן כדי להקטין את קוטר הפתיחה ל-50-100 מיקרון (ניתן להעריך בעין עם תרגול מספק).
- הפרדה מכנית של תאי האנטנות על ידי פיפטה עדינה הלוך ושוב על התווך עם פיפטת פסטר המלוטשת באש עד שלא נראה אשכול תאים. המדיום חייב להיראות מעורפל.
- הוסיפו 2 מ"ל מדיום 3+2 והחזירו את התאים בתווך עם פיפטת פסטר כדי להבטיח צפיפות תאים הומוגנית.
- חלק את מתלי התא ל-20 צלחות פטרי (כ-150 מיקרוליטר לכל צלחת) (איור 2B).
- תן לתאים להירגע ל-45 דקות.
- החליפו את מדיום 3+2 בכל צלחת ב-150 מיקרוליטר של מדיום 3+2 מבוקר עם תוספת של 5% FBS.
- הוסף כיסוי (איור 2C) ואטום צלחות עם Parafilm.
- הפוך את הכלים (איור 2D) ושמור אותן בין שתי שכבות לחות של רקמה סופגת בטמפרטורה של 20 מעלות צלזיוס באינקובטור.
8. שינוי מדיום התרבות
הערה: החלף חצי מהמדיום של התרבית כל 4-7 ימים.
- בדוק את הכלים כדי לאתר זיהום אפשרי. זה בדרך כלל גורם לשינוי צבע (מצהוב לאדמדם).
- פתח כלים והסר בעדינות את הכיסוי. עם מיקרופיפט P100, הסר 75 מיקרוליטר של מדיום והחלף אותו ב-85 מיקרוליטר של מדיום 3+2 מבוקר טרי עם תוספת של 5% FBS.
- החזירו את הכיסוי, אטמו כלים עם Parafilm, ושמרו אותם כמו קודם בין שכבות לחות של רקמה סופגת בטמפרטורה של 20 מעלות צלזיוס באינקובטור.
תוצאות
פרוטוקול זה מאפשר לשמור על ORNs של חרקים בחיים בתרבית למשך 3-5 שבועות. ORNs ניתנים לזיהוי בקלות לפי המורפולוגיה שלהם, המאופיינת בגוף תאים קטן, עגול או בצורת שקד ותהליכים דקים (נויריטים), שנראים בבירור לאחר יום אחד בלבד בתרבית (איור 3A) וממשיכים להימשך מספר ימים (איור 3B-D). ניתן להבחין בשתי אוכלוסיות של נוירונים לפי גודל הסומה שלהן: 5-7 מיקרון לרוב הנוירונים, ו-10-12 מיקרון למיעוט (איור 3D). סביר להניח שנוירונים קטנים הם ORNs, בעוד שנוירונים גדולים הם נוירונים מכאנוסנסוריים. נוירונים הם מונופולריים או דו-קוטביים ומופיעים באופן בודד, באשכולות קטנים או בתוך אנטנות לא מפורקות. הזהות הנוירונית של תאים אלו אושרה על ידי אימונוציטוכימיה עם נוגדנים אנטי-HRP13 (איור 4), כלי תקן זהב לתיוג נוירונים בנוירוביולוגיה של חרקים21. לאחר שבועיים, תאים לא-נוירונים, ככל הנראה תאי גליה, יוצרים שכבה רציפה על פני הצלחת שעליה גדלים ה-ORNs ומרחיבות את הנויריטים שלהם (איור 5A,B).
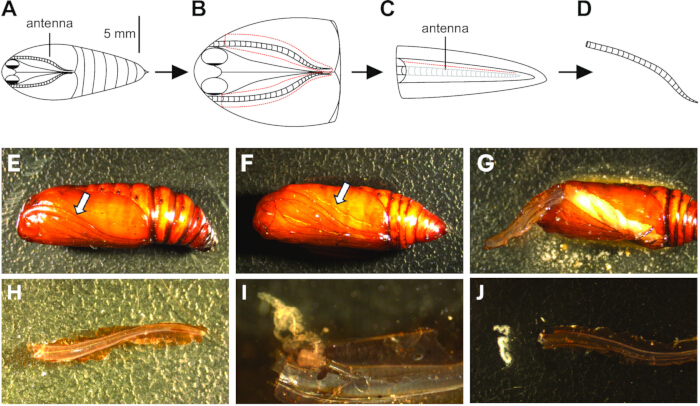
איור 1: ניתוח של גולם. (א) הצד הגחוני של הגולם. (ב) הקוטיקולה נחתכת סביב שתי האנטנות (קו אדום מקווים), תוך זהירות שלא לחדור עמוק מדי לגולם ולנקב את הרקמות הבוגרות המתפתחות. כל אנטנה מוסרת בעדינות ומועברת לצלחת מלאה במדיום 3+2. (ג) כל הרקמות הלא-אנטניות שנותרו מחוברות לקוטיקולה של הגולם מוסרות, והאנטנה מועברת לצלחת חדשה עם מדיום נקי 3+2. הממברנה השקופה שמכסה את האנטנה המתפתחת נחתכת בזהירות (קו אדום מקווקט). (D) האנטנה מוסרת בעדינות. (ה) תמונה המציגה את המקבילה ל-A. החץ הלבן מצביע על האנטנה. (ו) תמונה המציגה את המקבילה ל-B. החץ הלבן מצביע על החתך שנעשה בקוטיקולה. (G) האנטנה מורמת בעדינות (H) ואז מוסרת. (I) לאחר פיצול הממברנה שבה הוא מתפתח, האנטנה נדחפת מהקצה המרוחק שלה לכיוון הבסיס (J) ואז מוסרת. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
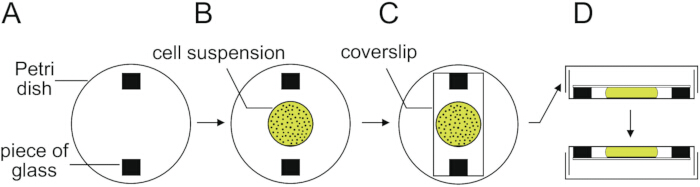
איור 2: טכניקת עמוד תלוי המשמשת לתרבות תאי אנטנה. (א) שתי חתיכות זכוכית מודבקות בוזלין סטרילי לתחתית צלחות בקוטר 35 מ"מ. (ב) תליית התא מצופה בעדינות במרכז הצלחת ומאפשרת להיצמד לצלחת למשך 45 דקות. (ג) לאחר החלפת מדיום התרבית, מונח בזהירות כיסוי סטרילי על חתיכות הזכוכית, מכסה ושומר על תליית התא במקומו. (ד) צלחת פטרי נסגרת לבסוף במכסה ונאטמת ברצועת פרפילם. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
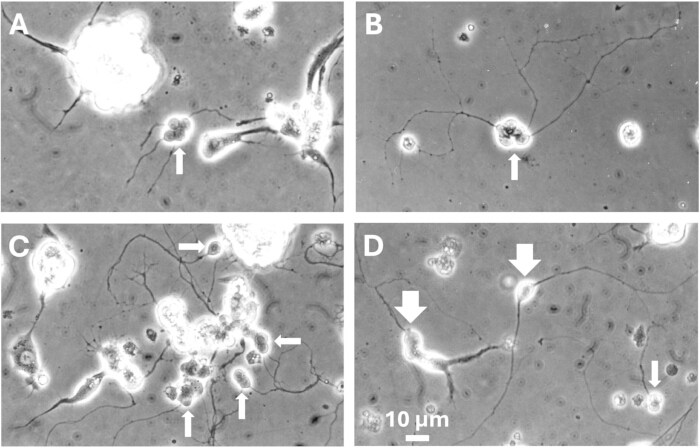
איור 3: תצפיות על תרבויות צעירות מאנטנות M. brassicae. (א) לאחר יום אחד, הנויריטים מתחילים להתארך. (ב) לאחר יומיים, הנוירייטים נראים מורחבים יותר. (C,D) לאחר 5 ימים, רשת הנויריטים הופכת לצפופה יותר. חיצים לבנים (ORNs) ניתנים לזיהוי בקלות לפי המורפולוגיה שלהם. הם נמצאים לבד או באשכולות קטנים. אשכולות תאים גדולים, כמו אלה הנראים ב-(C), הם ככל הנראה מחליפים אנטנתיים לא מנותקים. הם יכולים להכיל נוירונים, כפי שמעידים הנויריטים היוצאים מהם. נוירונים קטנים מסומנים בחצים קטנים (A-D) ושני נוירונים גדולים מסומנים בחצים גדולים (D). הקנה מידה (10 מיקרון) זהה ב-A עד D. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הצורה.
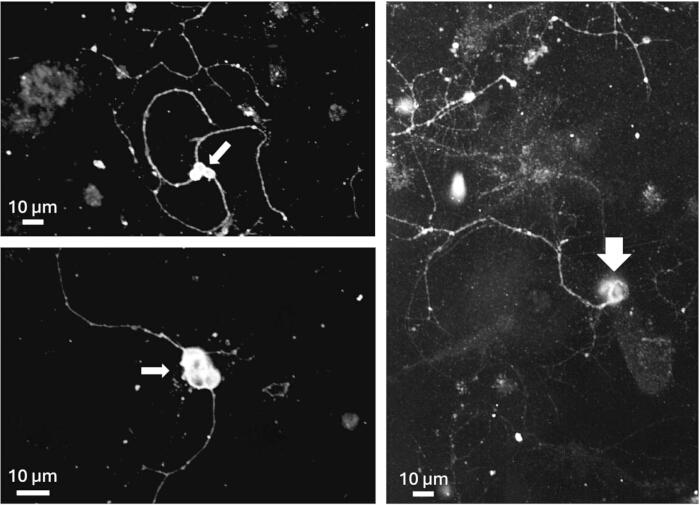
איור 4: צביעת אנטי-HRP על נוירונים קטנים (חץ קטן) וגדולים (חץ גדול). הניסוי בוצע על תרביות בנות 5 ימים. פס קנה מידה: 10 מיקרון. לפרוטוקול המפורט, ראו13. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
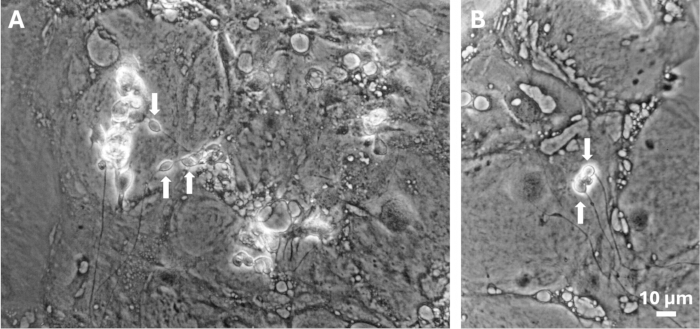
איור 5: תצוגות של תרביות ישנות מאנטנות M. brassicae. (A,B) לאחר שבועיים של תרבית, פני השטח של הצלחת מכוסים בשכבה צפופה של תאים לא-נוירונים. חצים לבנים מציינים ORNs. הקנה מידה (10 מיקרון) זהה ב-A וב-B. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של האיור.
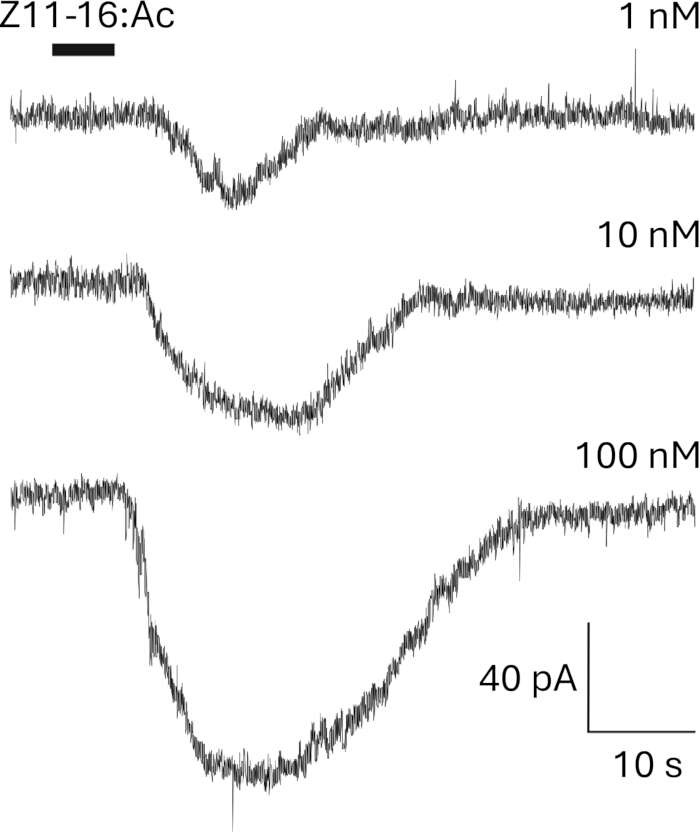
איור 6: נוירונים בתרבות לפחות שבועיים מגיבים לגירויי ריח. תגובות ל-Z11-16:Ac, תרכובת הפרומונים העיקרית של M. brassicae, ניתנות לתיעוד בתצורת התא השלמה של טכניקת הפלאק-קלמפ. Z11-16:AC הומס בדימתיל סולפוקסיד (DMSO) כאשר הריכוז הסופי לא עלה על 0.1%. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
דיון
השלבים המרכזיים בפרוטוקול הם כדלקמן: (i) ניתוח הגולם בשלב ההתפתחותי הנכון. כאשר הגולמים צעירים מדי, יש מעט מאוד רקמת אנטנות, וקשה מאוד לאסוף אותה כי היא רופפת ומתפזרת במהירות. כאשר גולמים מבוגרים מדי, ניתוח אנטנות קל יותר, אך הגולמים אינם שורדים במבחנה. בשלושת המינים השונים מהם הכנו תרביות ראשוניות של ORNs, קבענו בניסוי שהשלב האופטימלי לפירוק הגולם הוא רק חצי יום, בין 2.5-3 ימים כאשר הגולמים נשמרים בטמפרטורה של 20 מעלות צלזיוס. (ii) ערבוב ה-Grace's ו-L-15 של לייבוביץ'. המדיום של גרייס משמש בדרך כלל לתמיכה בצמיחת תאי חרקים, ומדיום L-15 של לייבוביץ' תומך בצמיחת נוירונים. (iii) הסרת FBS בעת ציפוי תאים. אם נדרשת תוספת FBS למדיום, המדיום המשמש לזריעת צלחות פטרי עם תליית התא חייב להיות נקי מ-FBS, שכן נוכחותו מעכבת את ההתקשרות התאים וכך את הישרדות התאים. (iv) גידול תאי אנטנות בצפיפות גבוהה. זה קריטי להישרדות ה-ORNs. (v) שימוש בטכניקת עמוד התלייה. הוא מקדם גדילה טובה יותר של התאים ומאריך משמעותית את תוחלת החיים של התרביות.
בעיה אפשרית לפתרון תקלות בפרוטוקול היא שזמן הדגירה עם הפאפיין (10-15 דקות) חייב להיות מותאם בהתאם לאצווה של הפאפיין והזמן שחלף מאז הכנת 100 מיקרולטר האליקווט, שכן הפפאן מאבד בהדרגה את פעילותו גם כאשר הוא מאוחסן בטמפרטורה של -80 מעלות צלזיוס. מכיוון שמראה האנטנות אינו משתנה באופן ניכר במהלך דגירה של פפיין, לא ניתן להעריך את זמן הדגירה באמצעות בדיקה ויזואלית.
השאלה היסודית נוגעת להבדלה בין ORNs במבחנה. עם הפרוטוקול המתואר, ORNs יכולים לשרוד 3-5 שבועות. בהתחשב בכך שהאנטנות נאספות כ-10 ימים לפני הופעת הבגרות, ושה-ORNs הופכים לתפקוד מלא 1-2 ימים לפני ההופעה – כפי שנמדד על ידי רישום EAG וסנסילום יחיד (תצפית אישית) – תקופת הישרדות זו מספקת תיאורטית מספיק זמן להבדלות שלהם במבחנה. נמצא כי ORNs מבטאים מגוון רחב של ערוצי יונים 8,9,10,14,22,23,24,25,26. הם מגיבים לגירויים הריחיים באופן תלוי במינון (איור 6), מה שמעיד שהם לפחות חלקית עוקבים אחרי מסלול התמיינות רגיל במבחנה.
ORNs של החרקים מוקפים בשלושה תאי עזר27 שמגדילים את מחלקת החישה ושולטים בהרכב היוני והחלבוני של הלימפה הסנסילרית שבה מתרחצים דנדריטים של ה-ORN. תאים נלווים אלו מסנתזים, במיוחד, חלבוני קישור ריח (OBPs). במחקר קודם, ראינו ביטוי גבוה של OBP בתרביות בנות 3-4 שבועות, מה שמרמז שתאי העזר גם מתמיינים במבחנה13. מגבלה של התרבית היא שהדנדריט של ORNs שמתרבות אינו נמצא בלימפה הסנסילרי, מדיום עם ריכוז K+ גבוה יותר וריכוז Na+ נמוך יותר מההמולימפה28,29, מה שיוצר פוטנציאל טרנסאפיתל בין שני התאים30. לעומת זאת, תרבית תאים מספקת גישה לתאים נלווים לאפיון אלקטרופיזיולוגי, גישה שלמיטב ידיעתנו לא ננקטה קודם לכן.
מעניין לציין שבדיקות ראשוניות שנערכו על S. littoralis מצביעות על כך שהפרוטוקול מתאים גם לגידול תאי חדק של עש. נצפו נוירונים בעלי צורה דומה, שלרוב הם נוירוני קולטני טעם, אם כי במספרים קטנים.
תרביות ראשוניות מספקות גישה נוחה ל-ORNs של חרקים לצורך הקלטת Patch-clamp. החיסרון העיקרי הוא כפול: יש לתרבית תאים בצפיפות גבוהה, כלומר יש לנתח אנטנות רבות; אלו תרבויות ראשוניות, כלומר יש להכין תרבויות חדשות באופן קבוע. עם זאת, זה שווה את זה, שכן למרות גודלם הקטן, תיקון נוירונים כאלה קל יחסית, בתנאי שהתרבית איכותית.
גילויים
למחברים אין מה לחשוף.
תודות
המחברים רוצים להודות למוניקה סטנגל על מתנת קו התאים MRRL-CH1.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מזרקים של 10 מ"ל | אוונטור | לא זמין | |
| מזרקים בנפח 2.5 מ"ל | אוונטור | לא זמין | |
| כיסוי 21 מ"מ x 26 מ"מ | אוונטור | WVR - 631-1335 | |
| שקופיות זכוכית בגודל 76 מ"מ x 26 מ"מ | אוונטור | WVR - 631-9460 | עובי: 1 מ"מ ומעלה; 0.05 מ"מ |
| Acrodisc Supor PF, 0.8/0.2 & mu; מטר, 25 מ"מ | אוונטור | WVR - 514-4102 | מסנני מזרק עם חיבור נמוך |
| אוטוקלאב | אין מותג ספציפי | לא זמין | |
| מבער בונזן | אין מותג ספציפי | לא זמין | היא חייבת להיות ניתנת להפעלה באמצעות פדל |
| קורנינג מנות תרבית רקמות Falcon Easy-Grip בגודל 35 מ"מ על 10 מ"מ. קורנינג 353001 | אוונטור | WVR - 734-0005 | צלחות פטרי סטריליות לגידול תאים |
| D-מניטול | סיגמא-אלדריץ' | M9546 | אחסון בטמפרטורת החדר |
| דומונט #5 מלקחיים | לא זמין | ||
| EGTA | סיגמא-אלדריץ' | E4378 | אחסון בטמפרטורת החדר |
| פלקון: 50 מ"ל, 25 ס"מ ומעל, אטם פקק, רקמה מטופל בתרבות | אוונטור | WVR - 734-0009 | בקבוקי תרבית תאים |
| סרום בקר עוברי | ThermoFisher Scientific | A3160801 | חנות ב--20 & דרגה; C |
| מדיום Grace's Insect בתוספת לקטאלבומין הידרוליזאט ושמרים (1x)-Gibco | ThermoFisher Scientific | 11605045 | מדיום החרקים של גרייס הוסף. חנות ב-5 & deg; C |
| HBSS ללא סידן ומגנזיום-גיבקו | ThermoFisher Scientific | 14170138 | תמיסת מלח מאוזנת של הנקס (HBSS). חנות ב-5 & deg; C |
| פיפטות סרולוגיות עטופות בנפרד, בז | אוונטור | WVR - 734-0352 | פיפטות חד-פעמיות סטריליות בנפח 10 מ"ל |
| פיפטות סרולוגיות עטופות בנפרד, בז | אוונטור | WVR - 734-0343 | פיפטות חד-פעמיות סטריליות בנפח 25 מ"ל |
| L15 בינוני - Gibco | ThermoFisher Scientific | 11415056 | ה-L-15 הבינוני של לייבוביץ'. חנות ב-5 & deg; C |
| מכסה תרבית רקמה למינרי | אין מותג ספציפי | לא זמין | |
| N-פנילתיאוראה | סיגמא-אלדריץ' | P7629 | אחסון בטמפרטורת החדר |
| פפאיין | סיגמא-אלדריץ' | P5306 | אבקה ליופילית, ממולאת אספטית. בחנות עוצמתים ב--80 & מעלות; C |
| פאראפילם | סיגמא-אלדריץ' | P7793 | |
| Pasteur pipettes plugged עם צמר גפן - 150 מ"מ | אין מותג ספציפי | להשתמש באוטוקלאב כפי שהוא (עם תקע כותנה) ולאחסן בקופסת חיטוי מתחת למכסה המנוע | |
| פניצילין-סטרפטומיצין | סיגמא-אלדריץ' | P4333 | פניצילין-סטרפטומיצין: 5000 UI/ml + 5000 ומיקרו; g/ml. חנות ב-20&DG; אליקווטים סטריליים C ב-1 מ"ל |
| מד pH | אין מותג ספציפי | ||
| בקר פיפטה | אוונטור | WVR - 612-7179 | חלופה זולה היא שימוש בפיפט ידני; בקרים (למשל משאבת פיפטה או משאבות פיפט בל-ארט) |
| חממה מקוררת | PHC אירופה | דגם MIR-154-PE | מערכת התאמת ריכוז CO2 היא מיותר לווסת ה-pH של מדיה בגידול חרקים |
| סטריאומיקרוסקופ | אין מותג ספציפי | הגדלה של 10x עד 64x מצוידת ב- מקור אור קר ומדריכי אור גמישים | |
| צלחות פטרי סטריליות לניתוח גולם | אוונטור | WVR - 391-0868 | כל צלחת סטרילית יכולה לשמש |
| מיכלי סטרילין עם פקק ברג, 30 מ"ל | אוונטור | WVR - 215-0321 | צינורות סטריליים של 30 מ"ל |
| מיכלי סטרילין עם פקק בורג, 7 מ"ל | אוונטור | WVR - 215-0328 | צינורות סטריליים בקוטר 7 מ"ל |
| וזלין | סיגמא-אלדריץ' | אחסון אספטי בטמפרטורת החדר; ג'לי נפט |
מקורות
- Gadenne, C., Barrozo, R., Anton, S. Plasticity in insect olfaction: To smell or not to smell. Annu Rev Entomol. 61, 317-333 (2016).
- Hansson, B. S. Olfaction in lepidoptera. Experientia. 51, 1003-1027 (1995).
- De Bruyne, M., Baker, T. C. Odor detection in insects: Volatile codes. J Chem Ecol. 34 (7), 882-897 (2008).
- Ayer, R. K., Carlson, J. Olfactory physiology in the Drosophila antenna and maxillary palp: Acj6 distinguishes two classes of odorant pathways. J Neurobiol. 23 (8), 965-982 (1992).
- Zufall, F., Hatt, H. Dual activation of a sex pheromone-dependent ion channel from insect olfactory dendrites by protein kinase C activators and cyclic GMP. Proc Natl Acad Sci U S A. 88, 8520-8524 (1991).
- Dubin, A. E., Harris, G. L. Voltage-activated and odor-modulated conductances in olfactory neurons of Drosophila melanogaster. J Neurobiol. 32, 123-137 (1997).
- Cao, L. H., et al. Distinct signaling of Drosophila chemoreceptors in olfactory sensory neurons. Proc Natl Acad Sci U S A. 113 (7), E902-E911 (2016).
- Kadala, A., Charreton, M., Jakob, I., Le Conte, Y., Collet, C. A use-dependent sodium current modification induced by type I pyrethroid insecticides in honeybee antennal olfactory receptor neurons. Neurotoxicology. 32 (3), 320-330 (2011).
- Lucas, P., Shimahara, T. Voltage- and calcium-activated currents in cultured olfactory receptor neurons of male Mamestra brassicae (lepidoptera). Chem Senses. 27 (7), 599-610 (2002).
- Stengl, M. Intracellular-messenger-mediated cation channels in cultured olfactory receptor neurons. J Exp Biol. 178, 125-147 (1993).
- Stengl, M., Hildebrand, J. G. Insect olfactory neurons in vitro: Morphological and immunocytochemical characterization of male-specific antennal receptor cells from developing antennae of male Manduca sexta. J Neurosci. 10 (3), 837-847 (1990).
- Gascuel, J., Masson, C., Bermudez, I., Beadle, D. J. Morphological analysis of honeybee antennal cells growing in primary cell cultures. Tissue Cell. 26 (4), 551-558 (1994).
- Lucas, P., Nagnan-Le Meillour, P. Primary culture of antennal cells of Mamestra brassicae: Morphology of cell types and evidence for biosynthesis of pheromone-binding proteins in vitro. Cell Tissue Res. 289 (2), 375-382 (1997).
- Pézier, A., et al. Calcium activates a chloride conductance likely involved in olfactory receptor neuron repolarisation in the moth Spodoptera littoralis. J Neurosci. 30 (18), 6323-6333 (2010).
- Eide, P. E., Caldwell, J. M., Marks, E. P. Establishment of two cell lines from embryonic tissue of the tobacco hornworm, Manduca sexta (L). In Vitro. 11 (6), 395-399 (1975).
- Huettner, J. E., Baughman, R. W. Primary culture of identified neurons from the visual cortex of postnatal rats. J Neurosci. 6 (10), 3044-3060 (1986).
- Ryazanova, A. D., Alekseev, A. A., Slepneva, I. A. The phenylthiourea is a competitive inhibitor of the enzymatic oxidation of dopa by phenoloxidase. J Enzyme Inhib Med Chem. 27 (1), 78-83 (2012).
- Hunt, A. J., Sherman, K. D., Weintraub, S. T. Characterization of phenoloxidases from larval cuticle of Sarcophaga bullata and a comparison with cuticular enzymes from other species. Can J Zool. 65 (11), 2501-2508 (1987).
- Zufelato, M. S., Lourenco, A. P., Simoes, Z. L., Jorge, J. A., Bitondi, M. M. Phenoloxidase activity in Apis mellifera honey bee pupae, and ecdysteroid-dependent expression of the prophenoloxidase mRNA. Insect Biochem Mol Biol. 34 (12), 1257-1268 (2004).
- Lees, G., Beadle, D. J. Cell Culture Approaches to Invertebrate Neuroscience. Beadle, D. J., Lees, G., Kater, S. B. , Academic Press. London. 109-147 (1988).
- Jan, L. Y., Jan, Y. N. Antibodies to horseradish peroxidase as specific neuronal markers in Drosophila and in grasshopper embryos. Proc Natl Acad Sci U S A. 79 (8), 2700-2704 (1982).
- Pézier, A., Acquistapace, A., Renou, M., Rospars, J. P., Lucas, P. Ca2+ stabilizes the membrane potential of moth olfactory receptor neurons at rest and is essential for their fast repolarization. Chem Senses. 32 (4), 305-317 (2007).
- Dolzer, J., Krannich, S., Stengl, M. Pharmacological investigation of protein kinase C- and cGMP-dependent ion channels in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. Chem Senses. 33 (9), 803-813 (2008).
- Krannich, S., Stengl, M. Cyclic nucleotide-activated currents in cultured olfactory receptor neurons of the hawkmoth Manduca sexta. J Neurophysiol. 100 (5), 2866-2877 (2008).
- Stengl, M. Inositol-triphosphate-dependent calcium currents precede cation currents in insect olfactory receptor neurons in vitro. J Comp Physiol A. 174 (2), 187-194 (1994).
- Laurent, S., Masson, C., Jakob, I. Whole-cell recording from honeybee olfactory receptor neurons: Ionic currents, membrane excitability and odourant response in developing worker bee and drone. Eur J Neurosci. 15 (7), 1139-1152 (2002).
- Steinbrecht, R. A. Pheromone Biochemistry. Prestwich, G. D., Blomquist, G. J. , Academic Press. Orlando. 353-384 (1987).
- Kaissling, K. E. R. H. Wright Lectures on Insect Olfaction. , Simon Fraser University, Burnaby. B.C., Canada. (1987).
- Kaissling, K. E., Thorson, J. Receptors for Neurotransmitters, Hormones and Pheromones in Insects. Sattelle, D. B., Hall, L. M., Hildebrand, J. G. , Elsevier, North Holland Biomedical Press. Amsterdam. 261-282 (1980).
- Gu, Y., Lucas, P., Rospars, J. P. Computational model of the insect pheromone transduction cascade. PLoS Comput Biol. 5 (3), e1000321(2009).