פרוטוקול זה מתאר את השימוש במערכת של שכבת ליפידים מישורית (planar lipid bilayer) מסוג Montal–Mueller ממוזערת עם הגברה אינטגרלית, לצורך ביצוע הקלטות יציבות של תעלה בודדת. השיטה מודגמת באמצעות הרכבה מחדש (reconstitution) של תעלת K2P סינתטית ומסומנת כדי לתקף את ביצועי המערכת.
מאמר שיטה
אלקטרופיזיולוגיה של תעלה בודדת באמצעות מערכת שכבת ליפידים מישורית ממוזערת מסוג Montal–Mueller להקלטה של תעלת K2P סינתטית
במאמר זה
סיכום
תקציר
שחזור תפקודי של תעלות יונים לתוך שכבות ליפידיות מישוריות (planar lipid bilayers) מספק אסטרטגיה לבחינת פעילות תעלות ברמת המולקולה הבודדת. עם זאת, מערכות bilayer קונבנציונליות מסוג Montal–Mueller דורשות בדרך כלל מערכי ניסוי מסורבלים, הרכבה ידנית של התא ונפחי הקלטה גדולים יחסית, אשר מגבירים את צריכת הריאגנטים ועשויים להוסיף מקורות נוספים של רעש חשמלי עקב חיווט מורחב וראשים חיצוניים (external headstages). כאן, אנו מציגים פלטפורמת bilayer ממוזערת ומוכנה לשימוש (BLMchipMM) המשולבת עם מגבר קומפקטי המאפשר הקלטות יציבות של תעלה בודדת עם צריכת ריאגנטים מופחתת ותפעול פשוט יותר. פרוטוקול זה מתאר את השימוש במערכת זו לביצוע מדידות אלקטרופיזיולוגיות של תעלה בודדת. באמצעות מערכת זו, שחזרנו תעלת K2P סינתטית (ancTREK1) והשתמשנו בה כחלבון בדיקה להוכחת היתכנות כדי לתקף את השחזור וההקלטה של תעלה בודדת. הקלטות של תעלה בודדת מראות קשר בין זרם למתח בתמיסות K+ סימטריות נטולות Mg2+, עם ערכי מוליכות העולים בקנה אחד עם אלו שדווחו עבור תעלות TREK1. השחזור המוצלח של תעלה דמוית K2P זו מדגים את התועלת של מערכת זו לניתוח תעלות בודדות בממברנות מלאכותיות.
מבוא
שחזור של תעלות יונים לתוך ממברי שכבה ליפידית מלאכותיים, הידועים גם כממברנות ליפידיות שחורות (BLMs), הוא אחת הטכניקות המבוססות לביצוע אפיון אלקטרופיזיולוגי של תעלות יונים ברמת המולקולה הבודדת1. היתרונות של BLMs נובעים מהמבנה שלהם. למעשה, שכבה ליפידית מישורית (PLB) נוצרת בתוך נקב במשטח לא פולרי, המפרידה בין שני תמיסות נוזליות. כך, על ידי חיקוי של ממברנה ביולוגית, היא מאפשרת הקלטה של פעילות תעלות יונים תחת תנאים מבוקרים מאוד, כולל הרכב הליפידים של הממברנה וריכוזי אלקטרוליטים או תרכובות כימיות, תוך שהיא נשארת נגישה משני הצדדים. נגישות זו מאפשרת גם להחדיר תעלות יונים באופן ישיר, למשל מתמיסה מיצלארית או באמצעות היתוך מונחה ליפוזומים2,3.
מערכת הממברנה המלאכותית הראשונה שתוארה נוצרה באמצעות טכניקת הצביעה4, שבה טיפה של ליפידים מומסים בממס אורגני לא נדיף נמרחת על פתח קטן באמצעות מברשת צבע. הוספת תמיסה מימית לשני צדדי הפתח מובילה לאחר מכן להיווצרות ספונטנית של שכבה ליפידית כפולה. עם זאת, חיסרון משמעותי של שיטה זו הוא 잔שאיות של עקבות ממס, העלולים להשפיע על תכונות הממברנה. כדי להפחית את כמות הממס האורגני השארי בתוך שכבות ליפידיות כפולות, פותחה שיטת הקיפול5, המאפשרת יצירת BLMs "נטולי ממס". בגישה זו, תמיסת ליפידים בממס נדיף נפרסת על פני השטח של המים כדי ליצור שתי שכבות יחידות (monolayers), ועל ידי העלאה הדרגתית של מפלס הפאזה המימית מעל הפתח, שכבות ליפידיות יחידות אלו מתקפלות מעל הפתח כדי ליצור שכבה כפולה. עם זאת, למרות שה-BLM המתקבל מוגדר כנטול ממס, היווצרות מוצלחת של השכבה הכפולה דורשת טיפול מקדים של הפתח בשכבה דקה של ממס לא נדיף. האלמנט המרכזי הנדרש לניסויים אלו מורכב מתא הקלטה עם שני מדורים מימיים (המכונים בדרך כלל cis ו-trans) המופרדים על ידי מחיצה ליפופילית עם פתח קטן (בקוטר של 50–250 µm) (איור 1). אלקטרודות כסף/כלוריד כסף (Ag/AgCl) מוחדרות לכל מדור. כאשר הן טבולות בתמיסת האלקטרוליט, אלקטרודות אלו יוצרות את החיבור האלקטרוכימי בין השכבה הליפידית הכפולה למכשיר ההקלטה. האחרון מורכב ממגבר voltage-clamp, המאפשר בקרה מדויקת של הפוטנציאל הטרנס-ממברנלי ומדידה סימולטנית של הזרמים היוניים העוברים דרך חלבונים יוצרי נקבים מוטמעים.
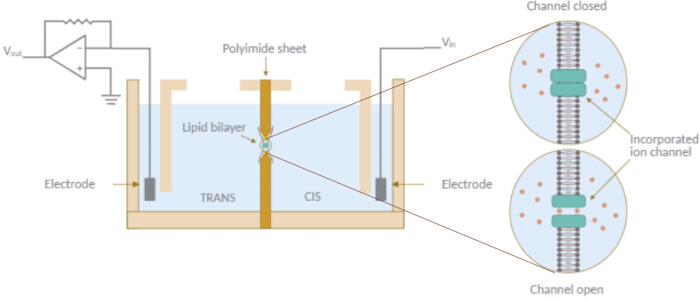
איור 1: סכימה של מערך אלקטרופיזיולוגי של שכבה ליפידית מישורית (PLB). סכימה של הרכיבים החיוניים הנדרשים לניסויי PLB. תא ההקלטה מורכב משני תאים מימיים (cis ו-trans) המופרדים על ידי מחיצה ליפופילית המכילה פתח שבו נוצרת שכבה ליפידית כפולה. אלקטרודות כסף/כסוף כלורי (Ag/AgCl) טבולות בתמיסת האלקטרוליט בכל תא. אלקטרודה אחת מחילה גירויי מתח (למשל, גלי סינוס, ריבוע או משולש), בעוד שהשנייה, המחוברת להארקה, מחוברת לממיר זרם למתח המהופך את הזרם היוני לאות מתח פרופורציונלי. האות מוגבר, מסונן (אופציונלי), עובר דיגיטציה ומוקלט לצורך ניטור וניתוח בזמן אמת. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
שיטות אחרות הוקמו אף הן ליצירת BLMs. ביניהן, גישה נפוצה מורכבת מיצירת שכבות ליפידיות כשהן תלויות על קצה של פיפטת patch-clamp. בהתאם לכך, שיטת ה-tip-dip6 מאפשרת יצירה של שכבה ליפידית תלויה ללא ממס על פתח של מיקרו-פיפטת זכוכית בעלת קוטר של ~4 µm, וזאת על ידי טבילה חוזרת של הקצה דרך שכבת מונו-ליפידית בממשק אוויר-מים, ובכך לכידה של עלה (leaflet) בודד בכל מעבר. טכניקת ה-patch-clamp שימשה גם למדידות של ערוץ בודד בשכבות ליפידיות. לדוגמה, בשיטת ה-punch-out7, נעשה שימוש בפיפטת זכוכית בעלת קוטר שבין 10 ל-80 µm כדי לבצע patch לממברנה גדולה שציירה במקור מעל פתח בתא הקלטה. לחלופין, שיטת ה-liposome-patch כוללת שימוש בvésicule בגודל ננו עד מיקרו שנוצרה מראש כ-BLM ללא ממס8,9. בפרט, giant unilamellar vesicles שימשו באופן נרחב להקלטות של ערוץ בודד באמצעות תצורות שונות של patch-clamp, כולל מצבי cell-attached ו-excised patch10,11.
מספר פלטפורמות הופיעו גם הן ליצירה מקבילית ואוטומטית של שכבות דו-שכבתיות (bilayers) מרובות. גישה אחת כזו היא טכניקת ה-droplet interface bilayer (DIB)12, שבה טיפות מימיות מונחות בתערובת של ליפידים וממס. בשיטה זו, מונושכבות ליפידיות מתגבשות באופן ספונטני סביב הטיפות, ויצירת דו-שכבה מתרחשת כאשר שתי טיפות באות במגע. במערכים מסוימים, ניתן להקים DIBs על גבי הידרוגלים כדי לשפר את יציבות הממברנה13. גישה חלופית המבוססת על יצירת DIB בקצה של פיפט זכוכית היא שיטת ה-contact bubble bilayer (CBB)14, שבה בועות מימיות מוחדרות לתוך פאזה שומנית באמצעות שתי מיקרו-פיפטות. בדומה לגישת ה-DIB, דו-שכבה ליפידית נוצרת באופן ספונטני כאשר שתי בועות מצופות ליפידים מובאות למגע. פלטפורמה נוספת מיוצגת על ידי מערכות BLM במערכים, המורכבות ממערכים של נקבים מוגדרים היטב בסדר גודל של מיקרו- עד ננו-מטרים המסודרים בתבנית של רשת. במערכות אלו, ניתן להקים דו-שכבות ליפידיות תלויות באופן ידני — באמצעות טכניקות של ציור או קיפול, או באמצעות פקיעה של וסיקולות ליפוזומליות15,16,17 — או באופן אוטומטי על ידי הזרקה רציפה של תמיסות ליפידים ובופר כאשר הן משולבות עם מבני תעלות מיקרופלואידיות18,19.
אף שפותחו שיטות רבות ליצירת BLMs נטולי ממסים, בעבודה זו אנו מתמקדים בשיטת הקיפול המיושמת בתוך פלטפורמה ממוזערת ואינטגרטיבית כדי לחקור התנהגות של תעלה בודדת של חלבוני ממברנה המשובצים בשכבה ליפידית מלאכותית. הניסויים בוצעו באמצעות מערכת ה-Elements, המורכבת משני רכיבים: ה-Elements Nanopore Reader (מגבר eNPR) וה-BLMchipMM (איור 2A ו-איור 2B). הראשון הוא מגבר voltage-clamp קומפקטי בעל רעש נמוך, המפשט את סביבת העבודה על ידי יצירת יחידה מלאה ועצמאית, ובכך מבטל את הצורך במכשירים חיצוניים נוספים. ה-BLMchipMM הוא מערכת ממוזערת מורכבת מראש שתוכננה עבור טכניקת Montal–Mueller ומשמשת כממשק הניסויי. היא מורכבת מתא הקלטה שקוף העשוי פולימתיל methacrylate (PMMA) המשולב עם לוח מעגל מודפס (PCB), הכולל שני תושבתים שנועדו להכיל חוטים של Ag/AgCl המשמשים כאלקטרודות לחיבור ישיר למגבר. מבנה הליבה של התא מורכב ממחיצת פוליאימיד האטומת בין שני רכיבי PMMA שקופים. המחיצה היא בעובי 50 µm, למעט באזור מרכזי קטן (3.78 mm2), שבו העובי מופחת ל-25 µm כדי להקל על יצירת השכבה הכפולה. במרכזו של אזור דק זה, נוצר חור קונואי באמצעות קידוח בלייזר, דבר המשפר את היציבות המכנית של השכבה הליפידית20,21. ארבעה קטרי חור (50, 75, 100, ו-140 µm) זמינים, מה שמאפשר כיוון של קיבול הממברנה (טבלה 1). כל רכיב PMMA כולל חלל בצורת C בנפח של 110 µL, היוצר שני תאי נוזלים משני צדי מחיצת הפוליאימיד להחזקת תמיסת האלקטרוליט. שני תעלות נוזלים נטויות נקדחו בכל בלוק PMMA בצדדים מנוגדים: תעלה אחת משמשת להחדרת אלקטרודת Ag/AgCl, בעוד שהשנייה מאפשרת כיוון ידני של מפלס התמיכה בתוך המאגר באמצעות פיפטור.
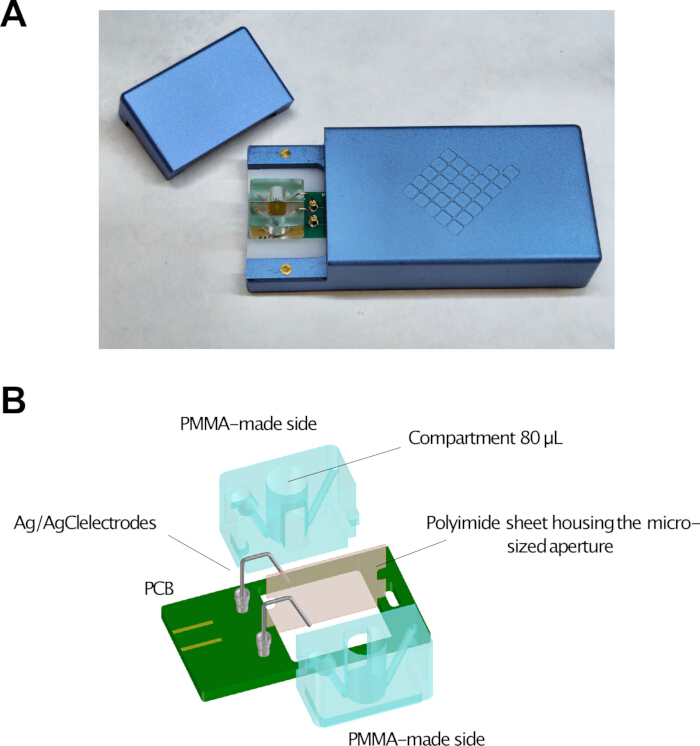
איור 2: מערכת Elements Nanopore Reader ו-BLMchipMM. (A) תצלום המראה את ה-BLMchipMM מוכנס לחריץ הייעודי של המגבר Elements Nanopore Reader (eNPR). (B) ייצוג סכימטי של רכיבי ה-BLMchipMM, כולל תא ההקלטה העשוי פולימתיל methacrylate (PMMA), המחיצה (septum) מפוליאימיד המכילה את הפתח (aperture) בגודל מיקרוני, והמעגל המודפס (PCB) עם תושבות לאלקטרודות Ag/AgCl וחריץ ליישור התא. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
| קוטר החור (µm) | 50 | 75 | 100 | 140 |
| עובי החור (µm) | 25 | 25 | 25 | 25 |
| קיבול ממברנה טיפוסי (pF) | 20–40 | 40–60 | 60–90 | 90–140 |
טבלה 1: מאפיינים של פורמטים זמינים של מפתחי BLMchipMM. קוטר החור, עובי המחיצה באזור המפתח וערכי קיבול ממברנה טיפוסיים עבור מכשירים מסוג BLMchipMM עם מפתחים של 50, 75, 100 ו-140 µm. ערכי קיבול הממברנה מוצגים עבור דו-שכבות שנוצרו מליפידים מסוג 1,2-diphytanoyl-sn-glycero-3-phosphocholine.
בדרך כלל, תאי הקלטה המשמשים במעבדות הם יחידות שהורכבו באופן עצמאי או מכשירים הזמינים מסחרית. במקרה הראשון, בניית המערכת כוללת הרכבה של רכיבים שונים ופיתוח שיטה אמינה ליצירת הפתח במחיצה (septum), דבר שעלול להגביל את הנגישות עבור מעבדות רבות. גם כאשר נעשה שימוש במכשירים מסחריים, הם דורשים לעיתים קרובות שילוב ידני של מספר רכיבים לפני כל ניסוי. לעומת זאת, ה-BLMchipMM מגיע מורכב מראש ואינו דורש פירוק בין ניסויים לצורך הליכי ניקוי שגרתיים. ניתן לשטוף ולהשתמש באותה יחידה עבור מספר ניסויים מבלי לפגוע באיכות יצירת הממברנה, בתנאי שהממסים שנעשה בהם שימוש תואמים לחומרי המכשיר. דבר זה מפחית שונות התלויה במשתמש וממזער את הסיכון לדליפות הקשור לאיטום ידני. השימוש באלקטרודות חוטי כסף חיצוניות, ניתנות להחלפה ולחידוש, מאריך עוד יותר את חיי השימוש של המערכת, במיוחד תחת תנאי ניסוי המאיצים את התכלות האלקטרודה.
יתרה מכך, מכשירים המיוצרים באופן ביתי מתאפיינים לעיתים בנפחי תאים גדולים, מה שמגדיל את כמות הרכיבים הביולוגיים והכימיים הדרושים לניסויים. לעומת זאת, המיניאטוריזציה של ה-BLMchipMM מאפשרת צמצום של הנפחים הניסויים, ובכך להפחית משמעותית את הצריכה של ריאגנטים, חלבונים ותרכובות אחרות. הדבר מהווה יתרון מיוחד בעבודה עם חלבוני ממברנה בעלי נاتج נמוך או כאלה שקשה לבטא, או כאשר העלות הגבוהה של סינתזת תרכובות בדיקה מעלה את העלות הכוללת של הניסויים. חשוב לציין כי ה-BLMchipMM מאפשר יצירת שכבות דו-שכבתיות עם כמות ממס מינימלית ותומך בתצורות ממברנה אסימטריות, שבהן כל עלה יכול להיות מורכב מזני ליפידים שונים5,22, דבר המקל על חקר תפקוד חלבוני ממברנה תחת תנאים מבוקרים.
באופן מסורתי, מדידות זרם מבוצעות באמצעות מגברים המיועדים לניסויי patch-clamp, אשר דורשים לרוב חיבור לממיר דיגיטלי (digitizer) נפרד לצורך רכישת נתונים ובקרה באמצעות ממשקים גרפיים. מערכות אלו אינן רק מסורבלות ויקרות, אלא הן כרוכות לעיתים קרובות בהליכי הגדרה שאינם אינטואיטיביים עבור משתמשים שאינם מומחים. בנוסף, בשל גודלו של תא ההקלטה והתכנון של מגברים סטנדרטיים — שלרוב חסר בהם מיגון מובנה להגנה על כניסת ה-headstage מפני הפרעות אלקטרוסטטיות — השימוש בכלוב פראדאי חיצוני הוא לרוב הכרחי. האיכות וההארקה של כלוב כזה עשויות להשפיע באופן משמעותי על ביצועי הרעש של המערכת. ה-BLMchipMM, כאשר הוא משולב עם מגבר אינטגרלי קומפקטי, מפשט את התצורה הזו על ידי הפחתת הצורך ברכיבים חיצוניים. הדיגיטציה של האות מתבצעת בתוך המכשיר, ומארז המערכת מספק מיגון המפחית את הרגישות להפרעות אלקטרומגנטיות סביבתיות.
כדי להדגים את הישימות של פלטפורמה זו, נעשה שימוש בערוץ דמוי K2P בשם ancTREK1, חבר אבסטרלי של תת-משפחת ה-TREK שנגזר באופן חישובי (Supplementary Figure 1), כחלבון בדיקה לאימות רקונוסטיטוציה מוצלחת והקלטה של ערוץ בודד. ערוצי K2P יוצרים ערוצי דליפות אשלגן דימריים המווסתים את פוטנציאל הממברנה במצב מנוחה ואת העירור התאי, כאשר ערוצי TREK מייצגים תת-משפחה מאופיינת היטב.
פרוטוקול
מחקר זה לא כלל משתתפים אנושיים, חומרים ממקור אנושי או חיות ניסוי. כתוצאה מכך, לא נדרש אישור אתי בהתאם להנחיות המוסדיות והלאומיות.
1. הכנת מערך האלקטרופיזיולוגיה
- כיול המכשיר
למרות שכיול פורמלי אינו נדרש כיוון שהמערכת מוגדרת במפעל, יש לוודא את תקינות תפקוד המערכת לפני יצירת הממברנה.- מדוד את התנגדות הכניסה בתנאי מעגל פתוח (כלומר, ללא ה-BLMchipMM מוכנס). ההתנגדות הנמדדת צריכה להיות ≥1 TΩ, מה שמאשר את תקינות כניסת המגבר.
- ודא את תגובת המערכת באמצעות תא מודל המכיל נגד של 1 GΩ. ההתנגדות הנמדדת צריכה להיות 1 GΩ בסטייה של ±30%, בהתאם לטווח הסבילות של הנגד המשולב.
- מדוד את רעש הבסיס בתנאי מעגל פתוח במתח קבוע (0 mV). רעש ה-RMS צריך להיות ≤300 fA בקצב דגימה של 10 kHz ורוחב פס של 5 kHz, מה שמאשר ביצועי מערכת בעלי רעש נמוך.
- הכנת אלקטרודות Ag/AgCl
- בשימוש ראשון, שטוף את חוטי הכסף באתנול ובמים מזוקקים פעמיים.
- עבור חוטים ששימשו בעבר, השתמש בנייר זכוכית בעל גרעין עדין במיוחד כדי להסיר את שכבת ה-Ag/AgCl הישנה מפני השטח של החוט, עד שפני השטח ייראו בכסף בהיר ואחיד עם ברק מתכתי נקי וללא שאריות נראות לעין. לאחר מכן שטוף באתנול ובמים מזוקקים פעמיים.
- בצע כלורציה לחלק הקצבי של חוטי הכסף על ידי השרייתם בנתרן היפוכוריט (NaOCl) בריכוז 1%–5% (איור 3A) עד שיהפכו לאפור בהיר, בדרך כלל למשך 15–30 דקות. עקוב אחר החוטים שעברו כלורציה לאורך זמן כדי לזהות התדרדרות במהלך השימוש, המתבטאת בשינוי צבע, בסחיפה (drift) של זרם הבסיס, או בשניהם.
הערה: ניתן לבצע כלורציה באמצעות אקונומיקה ביתית רגילה (NaOCl 1%–5%).
זהירות: אין לבצע כלורציה לחוטים לאורך כל אורכם. השאר את החלק הקצבי שנכנס לשקע ה-PCB ללא כלורציה כדי להבטיח חיבור חשמלי תקין.
זהירות: השקעים ב-PCB מיועדים לחוטי כסף בקוטר 0.5 mm. קטרים אחרים עלולים שלא להתאים כראוי או להוביל לחיבורים לא יציבים.
- הרכבת ה-BLMchipMM
- הכנס את החלק הקצבי שלא עבר כלורציה של שני חוטי הכסף לשקעי ה-PCB. השתמש בפינצטה במידת הצורך כדי למקם אותם כראוי (איור 3B).
- מקם את הקצוות שעברו כלורציה של החוטים בתוך הערוצים הפלואידיים שנקדחו ברכיב ה-PMMA (איור 3C).
- סובב בעדינות את ה-BLMchipMM והרכב אותו על ה-PCB על ידי התאמת השן התחתונה של תא ההקלטה מ-PMMA לחריץ הייעודי (איור 3D).
- בדוק את מיקום החוטים וודא שהם מגיעים לקצה הערוצים הפלואידיים. במידת הצורך, דחף בעדינות את החוטים עד שהקצוות יופיעו בתחתית התאים (איור 3E).
זהירות: מקם את החוטים קרוב ככל האפשר לרכיב ה-PMMA. קימור מופרז עלול לגרום למגע עם מכסה המגבר, מה שיוביל לקצר חשמלי ורוויית אות.
- הכנת ליפידים ותמיסת הקלטה
- הכן 100 µL של תמיסת הקסדקאן 1% (v/v) ב-100% n-hexane לטיפול מקדים בפתח הספטום. אחסן תמיסה זו ב-−20°C למשך שבוע לכל היותר.
- סספנד מחדש ליפידים מסוג 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) ב-100% n-pentane לריכוז סופי של 15 mg/mL. אחסן תמיסה זו ב-−20°C למשך 24 שעות לכל היותר.
- הכן את תמיסת ההקלטה האלקטרוליטית בטמפרטורת החדר (RT; 20°C–25°C) על ידי ערבוב של 3 mL של תמיסת KCl סטוק 1 M עם 150 µL של תמיסת 4-(2-hydroxyethyl)-1-piperazineethanesulfonic acid סטוק 1 M (pH 7.4 שכוונן עם KOH באמצעות מד pH). הוסף מים מזוקקים פעמיים כדי להביא את הנפח הסופי ל-15 mL. אחסן את התמיסה ב-4°C למשך שבוע לכל היותר (טבלה 2).
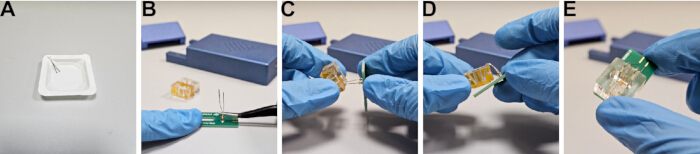
איור 3: הרכבת התקן ה-BLMchipMM. (A) כלורציה של חוטי Ag על ידי השריה במלבין. (B) הכנסת חוטי Ag לתשבצי ה-PCB. (C) מיקום חוטי Ag בתוך התעלות המיקרופלואידיות. (D) הצבת תא ההקלטה על ה-PCB. (E) אימות מיקום נכון של האלקטרודות בתוך התעלות הפלואידיות. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| ריאגנט | ריכוז סופי | נפח |
| מים מזוקקים פעמיים | — | הוסף עד ל-15 מ"ל |
| אשלגן כלוריד (KCl) (1 M) | 200 mM | 3 מ"ל |
| HEPES pH 7.4 (KOH) (1 M) | 10 mM | 150 µL |
טבלה 2: תמיסת רישום אלקטרוליטית. הרכב התמיסה האלקטרוליטית המשמשת לרישומים של PLB, כולל ריכוזי ריאגנטים ונפחי הכנה. הנפח הסופי מושלם ל-15 mL באמצעות מים מזוקקים פעמיים. יש לסנן את תמיסת הרישום באמצעות מסנן מזרק של 0.2 µm לפני השימוש.
הערה: סננו את תמיסת ההקלטה באמצעות מסנן מזרק של 0.2 µm לפני השימוש. ליפידים מסוג DPhPC עשויים להיות סופקים כאבקה יבשה או מומסים בכלורופורם. אחסנו את שתי הצורות בטמפרטורה של −20°C בבקבוקוני זכוכית אטומים תחת גז אינרטי למניעת חמצון. המתינו לאבקה היבשה להגיע לשיווי משקל ב-RT לפני הפתיחה. הכינו תמיסות טריות מאבקה יבשה והשתמשו בהן תוך 24 h. במידה והשתמשתם במלאי של כלורופורם, אידו את הממס לחלוטין תחת חנקן לפני השסעיה מחדש, שכן שאריות של כלורופורם עלולות לדסטביליז את הממברנה.
2. יצירת PLB בשיטת Montal–Mueller
השלבים הבאים מתארים יצירת ממברנה מלאכותית באמצעות שיטת הקיפול, המכונה גם טכניקת Montal–Mueller5 (איור 4). גישה זו כוללת טיפול מקדים של פתח המחיצה (septum aperture) בשכבה דקה של 1% (v/v) hexadecane ב-n-hexane, השקעת תמיסת ליפידים ליצירת מונו-שכבות בממשק האוויר-מים, וקיפול המונו-שכבות מעל הפתח בעוד שרמת תמיסת האלקטרוליט עולה באופן הדרגתי בתאי התא.
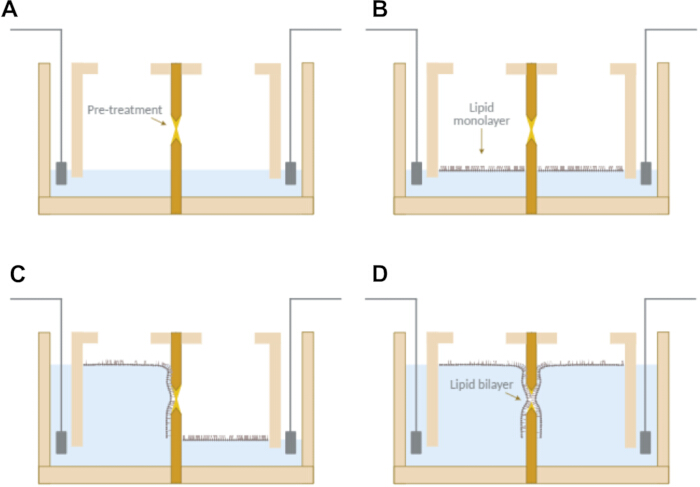
איור 4: היווצרות PLBs באמצעות שיטת Montal–Mueller. (A>) טיפול מקדים של הפתח ב-1% hexadecane ב-n-hexane ומילוי התאים עד לגובה הפתח. (B>) היווצרות שכבות מונו-ליפידיות בממשק האוויר-מים. (C> ו-D>) העלאה עקבית של מפלס הבאפר בכל תא, המובילה לקיפול השכבות המונו-ליפידיות ולהיווצרות דו-שכבה ליפידית נטולת ממס על פני הפתח. אנא לחצו כאן כדי להציג גרסה מורחבת של איור זה.
- יצירת הממברנה
- בצעו טיפול מקדימ (Pre-treat) לפתח המחיצה (septum aperture) באמצעות תמיסת hexadecane בריכוז 1% (v/v) ב-n-hexane בעזרת קצה פיפטה. מרחו כ-2 µL לכל צד (איור 4A).
- המתינו 5 דקות לאידוי הממס בטמפרטורה של 23°C–25°C ובלחות יחסית של 45%–50%.
- הכניסו את ה-BLMchipMM המורכב אל המגבר.
- חברו את המגבר למחשב באמצעות כבל USB ופתחו את תוכנת הרכישה.
- הגדירו את טווח הזרם ל-2 nA והפעילו את כלי הערכת ה-RC כדי לנטר את קיבול הממברנה ואת התנגדותה.
הערה: הגדרות הערכת ה-RC מוגדרות כברירת מחדל אך ניתנות להתאמה במידת הצורך. - מלאו כל תא ב-30 ± 2 µL של תמיסת הקלטה עד לשוליים התחתונים של הפתח (איור 4A).
זהירות: אין לאפשר לתמיסת ההקלטה להרטיב את האזור שסביב הפתח. - פזרו 2.5 ± 0.1 µL של תמיסת ליפידים בטיפות על פני השטח של הפאזה המימית בכל תא (איור 4B).
- המתינו 2 דקות לאידוי הממס.
- מיקמו קצה פיפטה בתחתית של תא אחד בזווית של כ-90° והוסיפו 80 ± 2 µL של תמיסת הקלטה. חזרו על הפעולה עבור התא השני (איור 4C ו-איור 4D).
הערה: זמני אידוי הממס מתייחסים לתנאים של 23°C–25°C, אוויר סטטי ולחות יחסית של 45%–50%. - סגרו את מכסה כלוב פאראדיי ונטרו את אות הזרם. ערכי התנגדות ממברנה שמעל 200 GΩ מעידים על יצירה מוצלחת של השכבה הכפולה ועל שלמות טובה של הממברנה.
הערה: יצירה מוצלחת של הממברנה מסומנת על ידי אות זרם בצורת גל ריבועי המתנדנד סביב אפס, עם אמפליטודה הפרופורציונלית לקיבול הממברנה (איור 5A).
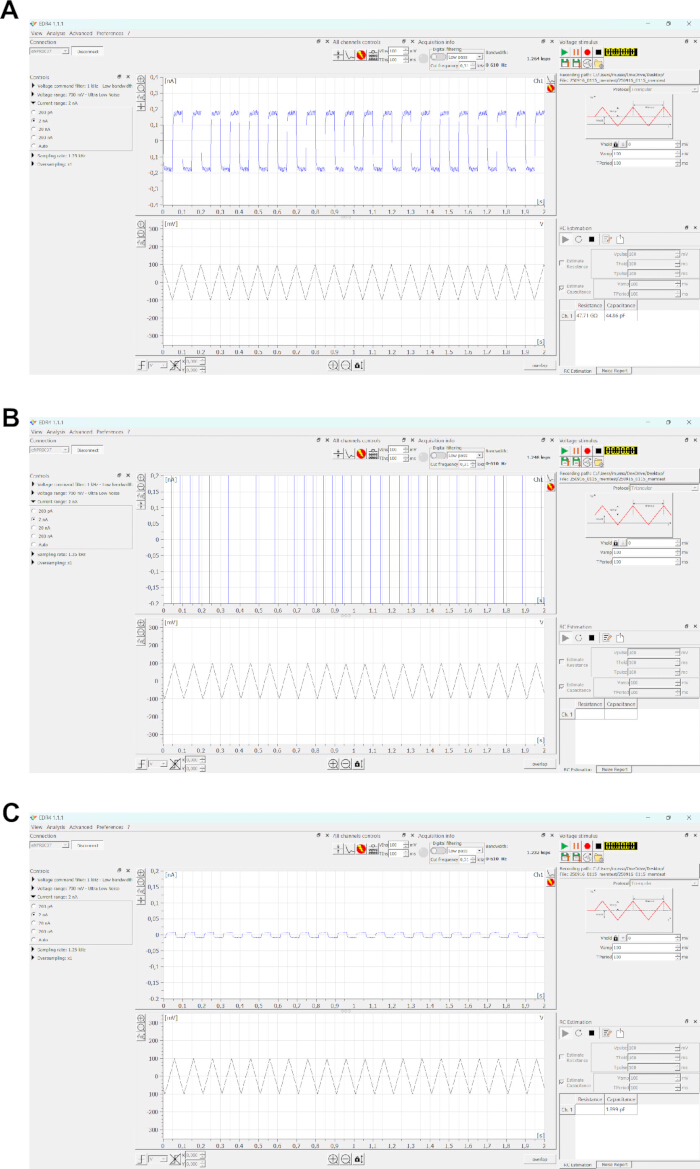
איור 5: ניטור יצירת ממברנה באמצעות ממשק תוכנת הרכישה. (A) עקבה מייצגת המראה יצירה מוצלחת של ממברנה. גל מתח משולש (100 mV peak-to-peak, 10 Hz) מייצר זרם קיבולי בצורת גל ריבועי, הפרופורציונלי לקיבוליות הממברנה (~45 pF). (B) עקבה מייצגת המצביעה על היעדר יצירת ממברנה, המתאפיינת ברוויה של אות הזרם. (C) אות קיבולי התואם לקיבוליות שארית כאשר השכבה הדו-שכבתית אינה נוצרת, למשל כאשר הפתח חשוף. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
הערה: אות המעבר בין גבולות טווח הזרם מעיד על כשל בממברנה (איור 5B).
הערה: רעש RMS עולה עם קיבול הממברנה ולכן עם גודל הפתח. טווחי רעש טיפוסיים שנמדדו בתנאי מתח קבוע (0 mV), בקצב דגימה של 5 kHz ורוחב פס של 2.5 kHz, הם: 0.48–2.00 pA (50 µm); 0.74–2.62 pA (75 µm); 1.00–3.52 pA (100 µm); ו-1.59–5.27 pA (140 µm).
הערה: הורדה והעלאה של מפלס התמיסה במיכל אחד עשויות לקדם את היווצרות הממברנה אם הניסיונות הראשוניים נכשלו.
הערה: במידה ויש צורך, יש להנחית בועת אוויר מעל הפתח למשך ~5 s באמצעות טיפ של פיפט כדי להקל על היווצרות השכבה הכפולה.
הערה: הורדת מפלס הבאפר מתחת לפתח (aperture) או הופעת בועת אוויר עלולות ליצור אות התואם לקבליות שגויה (איור 5C). אם הפלט דומה לאיור 5B, ייתכן שהטיפול המקדים לא היה יעיל. יש למרוח מחדש את תמיסת הטיפול המקדיים ואת הליפידים, או לנקות את המכשיר ולחזור על הפרוצדורה.
זהירות: בצעו פיצוי עבור היסט מתח (voltage offset compensation) רק כאשר אין ממברנה. אם קיימת ממברנה, קרעו אותה באמצעות פונקציית ה-ZAP לפני ביצוע הפיצוי.
הערה: ניתן לבצע את הניסויים על שולחן מעבדה סטנדרטי; עם זאת, ניתן להשתמש בשולחן נגד רעידות במידת הצורך.
3. ניקוי ה-BLMchipMM
- הסר את תא ההקלטה מה-PCB.
- שטוף את שני התאים ואת הערוצים הפלואידיים ב-100% isopropyl alcohol (IPA).
זהירות: אין לחרוג מדקת חשיפה אחת ל-IPA.
זהירות: אין להשתמש באצטון או ב-100% ethanol, שכן ממסים אלו עלולים לפגוע בחומר האיטום של התא.
הערה: ודא את תאימותם של ממסות נוספות ל-PMMA לפני השימוש. - שטוף היטב במים מזוקקים פעמיים.
- ייבש את תא ההקלטה לחלוטין באמצעות זרם עדין של אוויר דחוס עד שלא יישארו טיפות מים נראות לעין.
הערה: בחן את התא תחת זכוכית מגדלת מוארת כדי לוודא שלא נותרו שכבות שומניות. במידת הצורך, חזור על הליך הניקוי והייבוש.
הערה: ודא שהתא נקי ויבש לחלוטין לפני תחילת ניסוי חדש.
4. ביטוי וניקוי של תעלת היונים הסינתטית (ancTREK1)
- הכן את קונסטרקט הביטוי
השלבים הבאים מתארים אסטרטגיות שיクלון, ביטוי הטרוגני בתאי Freestyle-293F וניקוי של חלבון ancTREK1.
בנה את וקטור הביטוי באמצעות הגברה ב-PCR, עיכול באנזימי הגבלה, ליגציה והטרנספורמציה לתאי Escherichia coli בעלי כשירות כימית23,24בצע ביטוי של רצף ה-ancTREK1 (איור משלים 1(בעזרת וקטור ממאלים המכיל תג GFP בקצה ה-C ותג His₈, המאפשרים זיהוי מבוסס פלואורסצנציה)25,26 ושינוי של טיהור אפיניות בשני שלבים באמצעות ניקל–ניטרילוטריאצטית (Ni2שרף ⁺-NTA)27,28,29 ולאחר מכן שרף ננו-נוגדן (nanobody) נגד GFP30,31,32. - הגברה של DNA של ancTREK1 באמצעות PCR
- דללו את הפריימרים ל-PCR ואת תבנית ה-DNA לריכוזים סופיים של 10 µM ו-~20 נ"ג/µL תוך שימוש במים מזוקקים פעמיים סטריליים.
- הפשיתו את כל הריאגנטים על קרח.
- הכן/הכיני 50 µL תגובת PCR המכילה 10 µL של בופר 5×, 2.5 µL מכל אחד 10 µM פריימר, 2 µL של תבנית DNA, 1 µL של 10 mM dNTPs, 0.5 µL של DNA polymerase בעל נאמנות גבוהה (high-fidelity), ומים מזוקקים פעמיים סטריליים להשלמת הנפח (טבלה 3ערבבו בעדינות וסובבו במערבל צנטריפוגה לזמן קצר.
- בצע PCR בתנאים הבאים: דנטורציה ראשונית ב- 98°C למשך 3 דקות; 30 מחזורים של 98°C למשך 30 שניות, 68°C למשך 30 שניות, ו- 72°C למשך 30 שניות; הארכה סופית ב- 72°C למשך 3 דקות (טבלה 4).
- הריצו את תוצרי ה-PCR על ג'ל אגרוז בריכוז 1% (משקל/נפח) בבופר TAE בריכוז 1× במתח של 60V למשך 90 דקות, וגזרו את הפס הנכון.
הערה: טהרו את תוצרי ה-PCR באמצעות שיטת מיצוי מג'ל (gel extraction), מדדו את ריכוז ה-DNA באורך גל של 260 ננומטר, ואחסנו את תוצרי ה-PCR המטוהרים ב-20°C במידת הצורך.
- בצע עיכול באמצעות אנזימי הגבלה
- הכינו תגובות עיכול המכילות 2 µg של תוצר ה-PCR ו- 2 µg של DNA פלסמי במבחנות נפרדות. הוסף 5 µL של באפר 10×, 0.5 µL EcoRI ו- 0.5 µL אנזימי הגבלה NotI, והבאה לרמה של 50 µL עם מים מזוקקים פעמיים (טבלה 5).
- ערבבו בעדינות והדגרירו ב- 37°C למשך 3 שעות.
- בצע אינאקטיבציה תרמית של אנזימים ב- 65°C למשך 20 דקות.
- הוסף 1 µL אלקאלי פוספטאז לעיכול הווקטור ולהדגירה ב- 37°C למשך שעה אחת.
- הריצו את תוצרי העיכול על ג'ל אגרוז בריכוז של 1% ובצעו אקסטרקציה של הפסים הרצויים.
הערה: טהר את מקטעי ה-DNA באמצעות שיטות טיהור מתאימות ושמור את ה-DNA המטוהר בטמפרטורה של −20°C במידת הצורך.
- בצעו ליגציה וטרנספורמציה
- הכן 20 µL תגובת ליגציה המכילה וקטור וסרט DNA (insert) (יחס מולרי של 3:1), 2 µL בופר ליגאז 10×, ו- 1 µL אנזים ליגאז (טבלה 6).
- דגירה בטמפרטורת החדר (RT) למשך שעה אחת.
- הפשיר תאי E. coli בעלי כשירות כימית (chemically competent) על קרח.
- הוספה 5 µL של תערובת הליגציה אל 50 µL של תאים ולהדגיר על קרח למשך 20 דקות.
- הלם חום ב- 42°C למשך דקה אחת, ולאחר מכן להחזיר לקרח למשך 2 דקות.
- הוסף 450 µL מצע LB והדגרה ב- 37°C עם ניעור למשך שעה אחת.
- סובב במצנטריפוגה ב-3,000 × g למשך דקה אחת והשב את המשקע ב- 50 µL.
- פרוס על אגר סלקטיבי והדגר למשך לילה ב- 37°C.
הערה: יש לאשר את הצלחת השחלוף באמצעות ריצוף.
- טרנספקציה של תאי HEK293F
- זריעה של תאי 293F בנפח של 250 מ"ל בריכוז של 0.5 × 10⁶ תאים/מ"ל במצע תליה ללא סרום והדגירה ב- 37°C עם 6% CO₂.
- הכנה 250 µg של DNA בנפח סופי של 3 מ"ל של מצע עם תכולת סרום מופחתת.
- הכנה 750 µg של פוליאתילנימין (PEI) במים בריכוז של 1 מג/מ"ל, כוון את ה-pH ל-6.9–7.1 באמצעות NaOH, סנן את התמיסה באמצעות מסנן סטרילי, והשלם את הנפח הסופי ל-3 מ"ל באמצעות מצע עם סרום מופחת.
- שלבו את תמיסות ה-DNA וה-PEI, ערבבו בעדינות והדגרירו למשך 10 דקות בטמפרטורת החדר (RT).
- הוסיפו את התערובת לתאים בטיפות.
- הוסף סודיום בוטיראט (sodium butyrate) לריכוז סופי של 10 mM לאחר 4 שעות.
- יש לקצור את התאים לאחר 48 שעות באמצעות סבוב בצנטריפוגה במהירות של 500 × g למשך 15 דקות.
- שמרו את משקעי התאים בטמפרטורה של −80°C.
- המסה של חלבונים ממברנתיים
- הפשיר על קרח משקעי תאים מ-100 מ"ל של תרבית HEK293.
- שחזר את משקע התאים (cell pellet) בבופר ליזיס ביחס של 1:10 (משקל/נפח) (טבלה 7).
הוסיפו דטרגנט עד לריכוזים סופיים של 1% n-dodecyl-β-D-maltoside (DDM) ו-0.1% cholesteryl hemisuccinate (CHS). - דגרו עם סיבוב ב- 4°C למשך 2 שעות.
- סבב בצנטריפוגה ב-100,000 × g למשך שעה אחת ב- 4°C.
- אסוף את העלייה.
זהירות: בצע את כל השלבים ב- 4°C שימוש בבופרים שקולל מראש.
- בצע טיהור באמצעות IMAC
- מארז 500 µL של Ni2⁺שרף NTA לתוך עמודת כבידה.
- השגה את שיווי המשקל של שרף באמצעות שני נפחי עמודה (CVs) של בופר שיווי משקל (טבלה 8).
- טען את הדגימה והדגר תחת ערבוב עדין במהירות של 10 סל"ד ו- 4°C למשך 3 שעות.
- הציבו את העמודה בצורה אנכית ואספו את הנוזל העובר (flowthrough) באמצעות זרימה בכבידה.
- שטפו את השרף ב-10 נפחי עמודה (CVs) של חוצץ שטיפה המכיל 30 mM אימידזול.
- אלט את החלבון עם 10 נפחי עמודה (CVs) של בופר אלucian המכיל 300 mM אימידזול.
הערה: נתחו את הפראקציות באמצעות SDS-PAGE (איור 6). שמרו את פלואו-ת'רו (flowthrough) ואת פракציוני השטיפה לצורך אנליזה. אחסנו את החלבון ב- 4°C במידה ונדרש, למשך לילה
- בצע טיהור באמצעות נוגדן נגד GFP
- ארוז 1 מ"ל של שרף anti-GFP בעמודה המבוססת על כבידה.
- שווה את שרף הכולסטרה עם 2 נפחי עמודה (CVs) של Buffer 1 (טבלה 9העמיסו את אלואט ה-IMAC והדגרירו עם ערבוב עדין במהירות של 10 סל"ד ו- 4°C למשך 3 שעות.
- מקמו את העמודה בצורה אנכית ואספו את התסנן (flowthrough) באמצעות זרימה בכבידה.
- שטפו את השרף באופן רצפי עם 10 נפחי עמודה (CVs) של בופר 1, 10 נפחי עמודה של בופר 2, ו-10 נפחי עמודה של בופר 1.
- דללו את הפרוטאוז HRV-3C ב-2 מ"ל של Buffer 1 ביחס של 1:50 בין הפרוטאוז לחלבון.
- הוסיפו לסומך (resin) את Buffer 1 בתוספת פרוטאז HRV-3C, ערבבו בעדינות והדגרירו למשך לילה ב- 4°C במנח סטטי אנכי.
- אסוף את החלבון המנוגס בחלק האלוציה.
- רכז את הדגימה באמצעות מרכז צנטריפוגלי עם סף סינון (cutoff) של 50 kDa בכוח של 3,000 × g ו- 4°C עד לנפח סופי של בערך 500 µL הושג.
הערה: נתוח את הפראקציות באמצעות SDS-PAGE (איור 7). השHסה את החלבון באופן תקופתי במהלך הריכוז כדי למנוע אגרגציה. אחסן את החלבון המנוקה בטמפרטורה של −80°C לאחר הקפאה מהירה. בערך 60 µg ניתן להפיק כמות זו של חלבון מ-100 מ"ל תרבית.
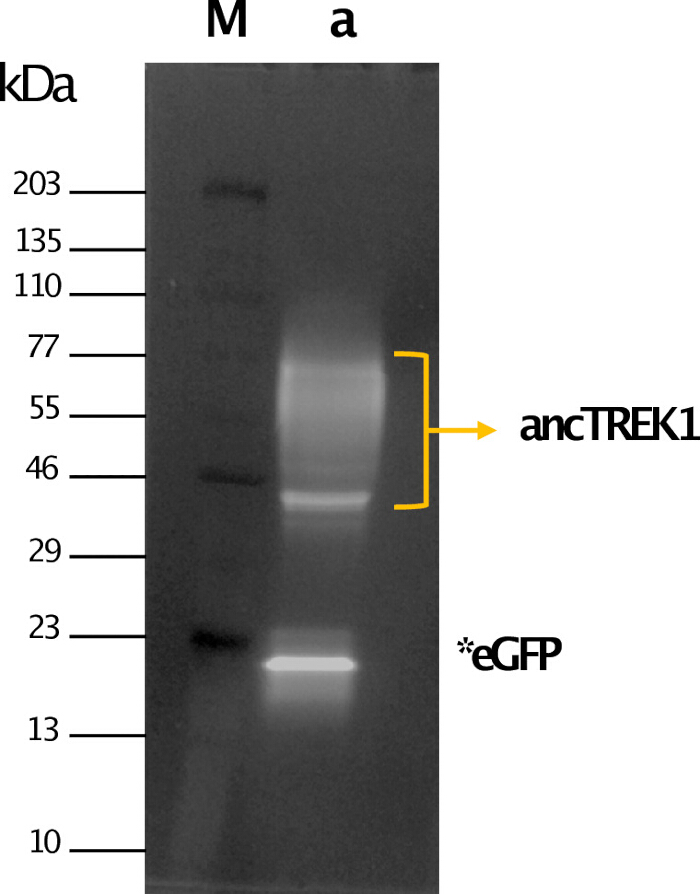
איור 6: טיהור של ancTREK1 באמצעות כרומטוגרפיית זיקה למסנני מתכות (IMAC). ניתוח של פראקציות אלוציה מ-IMAC באמצעות אלקטרופורזה של ג'ל פוליאקרילאמיד עם סודיום דודציל סולפט (SDS-PAGE) עם זיהוי פלואורסצנציה. נתיב M: סמן משקל מולקולרי. נתיב a: פראקציית אלוציה מ-IMAC המראה ancTREK1 המסומן בחלבון פלואורסצנטי ירוק (GFP) (חץ צהוב). GFP חופשי הנובע מפירוק עצמי מסומן ב-*eGFP. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
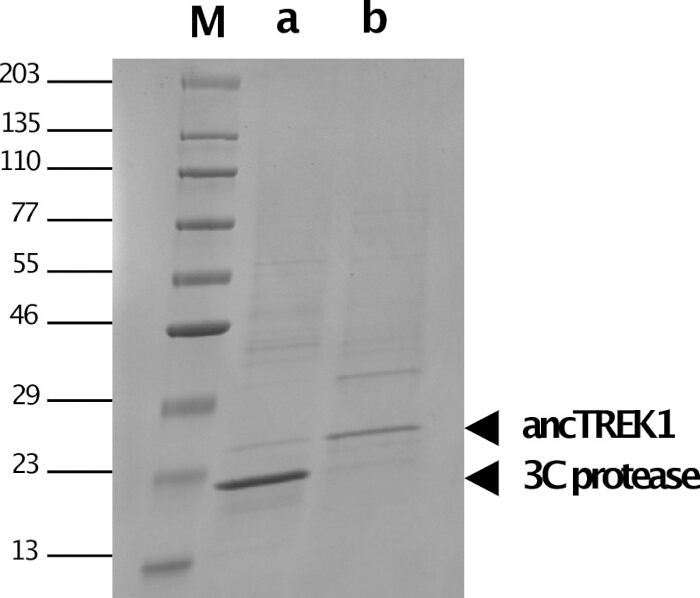
איור 7: טיהור של ancTREK1 באמצעות כרומטוגרפיית זיקה עם נוגדן ננו (nanobody) נגד GFP. ניתוח SDS-PAGE של פראקציות אלוציה שנצבעו ב-Coomassie Blue. נתיב M: סמן משקל מולקולרי. נתיב a: פראקציית אלוציה של anti-GFP המראה נוכחות של 3C protease. נתיב b: ancTREK1 מטוהר לאחר ריכוז. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| ריאגנט | נפח לתגובה של 50 µL | ריכוז סופי |
| מים מזוקקים פעמיים | להוסיף עד 50 µL | — |
| 5× PhusionTM GC buffer | 10 µL | 1× |
| dNTPs (10 mM כל אחד) | 1 µL | 200 µM כל אחד |
| פריימר קדימה (10 µM) | 2.5 µL | 0.5 µM |
| פריימר אחורה (10 µM) | 2.5 µL | 0.5 µM |
| DNA תבנית (20 ng/µL) | 2 µL | 0.8 ng/µL |
| PhusionTM High-Fidelity DNA polymerase | 0.5 µL | 0.02 U/µL |
טבלה 3: הגדרת תגובת תגובת שרשרת פולימראז (PCR) להגברה של ancTREK1. הרכב ריאגנטים, נפחים וריכוזים סופיים ששימשו להגברת PCR של רצף ה-DNA של ancTREK1 באמצעות מערכת DNA polymerase בעלת נאמנות גבוהה (high-fidelity).
| שלב | טמפרטורה | זמן | מחזורים |
| דנטורציה ראשונית | 98°C | 3 min | 1 |
| דנטורציה | 98°C | 30 s | 30 |
| השכבה (Annealing) | 68°C | 30 s | 30 |
| הארכה | 72°C | 30 s | 30 |
| הארכה סופית | 72°C | 3 min | 1 |
| שמירה | 12°C | שמירה | — |
טבלה 4: תנאי מחזורי PCR להגברה של ancTREK1.פרמטרי מחזור תרמי ששימשו להגברה של רצף ה-DNA של ancTREK1, כולל שלבי דה-נטורציה, היסתך (annealing), הארכה והארכה סופית.
| רכיב | עיכול של המקטע להכנסה (50 µL) | עיכול ודה-פוספורילציה של וקטור (50 µL) |
| ddH₂O | אל 50 µL | אל 50 µL |
| בופר ANZA Red 10× | 5 µL | 5 µL |
| DNA | תוצר PCR של ancTREK1 (2 µg) | DNA של וקטור pEG BacMam C-term 3C eGFP His8 (2 µg) |
| Anza™ EcoRI | 0.5 µL | 0.5 µL |
| Anza™ NotI | 0.5 µL | 0.5 µL |
| Anza™ Alkaline Phosphatase | — | 1 µL |
טבלה 5: עיקר באמצעות אנזימי הגבלה של המקריב והוקטור עבור שיבוט ancTREK1. תנאי תגובה לעיקר באמצעות אנזימי הגבלה של תוצר ה-PCR של ancTREK1 ושל וקטור הביטוי באמצעות האנזימים EcoRI ו-NotI. העיקר של הוקטור כולל שלב דה-פוספורילציה נוסף באמצעות פוספטאזה בסיסית כדי למנוע ליגציה עצמית.
| רכיב | כמות (20 µL תגובה) |
| ddH₂O | אל 20 µL |
| בופר T4 DNA Ligase בריכוז 10× | 2 µL |
| DNA של מקטע ancTREK1 (843 bp) | 10 ng |
| DNA של וקטור pEG BacMam C-term 3C eGFP His8 (7673 bp) | 30 ng |
| T4 DNA Ligase | 1 µL |
טבלה 6: תנאי ליגציה של וקטור-אינסרט עבור שיבוט ancTREK1. תערובת תגובה לליגציה של האינסרט ancTREK1 לתוך וקטור הביטוי pEG BacMam ביחס מולרי של 1:3 באמצעות T4 DNA ligase.
| רכיב | ריכוז סופי | כמות (עד 5 מ"ל) |
| ddH₂O | — | ל-5 מ"ל |
| KCl (1 M) | 200 mM | 1 מ"ל |
| Tris-HCl pH 8 (1 M) | 20 mM | 100 µL |
| MgCl₂ (100 mM) | 1 mM | 50 µL |
| מעכב הפרוטאז PMSF (בריכוז 100 mM) | 1 mM | 50 µL |
| מעכב הפרוטאז Leupeptin (1 mg/mL) | 1 µg/mL | 5 µL |
| מעכב הפרוטאוז פרוטנין (1 mg/mL) | 1 µg/mL | 5 µL |
| מעכב הפרוטאז Pepstatin A (ריכוז 1 מ"ג/מ"ל) | 1 µg/mL | 5 µL |
| DNase I (50 mg/mL) | 25 µg/mL | 2.5 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 1% | 500 µL |
| כולסטריל המיסוצינאט (CHS, 2%) | 0.10% | 250 µL |
טבלה 7: הרכב באפר ליזיס להפקת חלבוני ממברנה. הרכב באפר ליזיס המשמש להמסה של חלבוני ממברנה, הכולל מלחים, חומרי באפרינג, מעכבי פרוטאז, נוקלאז ודטרגנטים. הערה: יש להכין את הבאפרים טריים לפני השימוש.
| בופר שיווי משקל (נפח סופי 10 mL) | ||
| מרכיב | ריכוז סופי | כמות |
| ddH₂O | — | עד ל-10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| בופר שטיפה (נפח סופי 10 mL) | ||
| מרכיב | ריכוז סופי | כמות |
| ddH₂O | — | עד ל-10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 30 mM | 60 µL |
| בופר אלוציה (נפח סופי 10 mL) | ||
| מרכיב | ריכוז סופי | כמות |
| ddH₂O | — | עד ל-10 mL |
| KCl (1 M) | 200 mM | 2 mL |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| Cholesteryl hemisuccinate (CHS, 2%) | 0.01% | 50 µL |
| Imidazole pH 8 (5 M) | 300 mM | 600 µL |
טבלה 8: הרכבי באפרי IMAC לניקוי ancTREK1. פורמולציות של באפרי שיווי משקל, שטיפה ואלוציה ששימשה לניקוי של ancTREK1 באמצעות כרומטוגרפיית ספיקה של יוני מתכת מאובחלים. הערה: ניתן לשמור את התמיסות בטמפרטורה של 4°C למשך עד שישה חודשים.
| בופר 1 (נפח כולל של 10 מ"ל) | ||
| רכיב | ריכוז סופי | כמות |
| ddH₂O | — | אל 10 מ"ל |
| KCl (1 M) | 200 mM | 2 מ"ל |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| כולסטריל המיסוקצינאט (CHS, 2%) | 0.01% | 50 µL |
| בופר 2 (נפח כולל 10 מ"ל) | ||
| רכיב | ריכוז סופי | כמות |
| ddH₂O | — | ל-10 מ"ל |
| KCl (1 M) | 500 mM | 5 מ"ל |
| Tris-HCl pH 8 (1 M) | 20 mM | 200 µL |
| n-Dodecyl-β-D-maltoside (DDM, 10%) | 0.05% | 50 µL |
| כולסטריל המיסוצינאט (CHS, 2%) | 0.01% | 50 µL |
טבלה 9: הרכבי באפרים לכרומטוגרפיית זיקה של נוגדן ננו anti-GFP. פורמולציות של באפרים המשמשים לטיהור של ancTREK1 באמצעות כרומטוגרפיית זיקה של נוגדן ננו anti-GFP. הערה: ניתן לשמור את התמיסות בטמפרטורה של 4°C למשך עד שישה חודשים.
5. תיעוד פעילות תעלות יונים
- הערכת איכות הממברנה
- סגור את מכסה כלוב פאראדיי.
- החל an triangular voltage waveform (100 mV, 10 Hz) להערכת קיבול הממברנה.
- החל מדרגות מתח (בגידולים של ±20 mV עד ±200 mV) להערכת התנגדות הממברנה.
- עקב אחר ערכי זרם ורעש.
הערה: השתמש בקצב דגימה של 5 kHz ובסינון low-pass של 2.5 kHz, אלא אם נדרש אחרת.
- הקלטת פעילות ancTREK1
- דלל חלבון ancTREK1 בתמיסת הקלטה לריכוז של כ-2 µg/mL.
הערה: במהלך הדילול, בצע דילול ביניים ב-Buffer 1 לפי הצורך כדי לשמור על ריכוז הדטרגנט מעל ריכוז המיסלה הקריטי (CMC) לפני הדילול הסופי לתמיסת ההקלטה. - הוסף 1 µL של תמיסת חלבון מדוללת לתא ה-cis בקרבת פתח המחיצה.
הערה: פוטנציאל ממברנה מוגדר כ-Vcis − Vtrans. אוריינטציית התעלה לא נקבעה ישירות במחקר זה; לכן, ההקלטות מתוארות ביחס לפולריות המתח המוחל ולא לפי צד הממברנה שהוקצה. - החל מדרגות מתח בגידולים של ±20 mV עד ±120 mV.
- עקב אחר אירועי השחלה של תעלות.
הערה: השחלת תעלה מסומנת על ידי מעברים בדידים של זרם בין מצבים סגורים ופתוחים. אם לא התרחשה השחלה, הוסף חלבון נוסף או צור מחדש את הממברנה. אם הושחלו מספר תעלות, קרע את הממברנה והפחת את ריכוז החלבון.
- דלל חלבון ancTREK1 בתמיסת הקלטה לריכוז של כ-2 µg/mL.
תוצאות
מאפייני זרם–מתח (I–V) של ממברנות PLB
הטבע ההידרופוביה האינהרנטי של ממברנות דו-שכבתיות הופך אותן לבלתי חדירות למינים טעונים. עם זאת, הפעלת שדה חשמלי חיצוני יכולה להשרות היווצרות של נקבים זמניים בגודל ננומטרי, ובכך להשפיע על חדירות הממברנה ועל המוליכות שלה33. כדי להעריך את איכותן של דו-שכבות מלאכותיות שנוצרו מליפידים מסוג 1,2-diphytanoyl-sn-glycero-3-phosphocholine, נמדדו קיבול הממברנה, ההתנגדות ומאפייני ה-I–V בהיעדר חלבונים מושתלים. הופעלה סדרה של מדרגות מתח בטווח שבין ±20 ל-±200 mV (במרווחים של ±20 mV), והזרמים הטרנס-ממברנליים שנוצרו נרשמו. הנתונים נדגמו בתדר של 5 kHz ועברו סינון מעביר-נמוך (low-pass filter) ב-2.5 kHz.
קיבוליות הממברנה (Cm) וההתנגדות של הממברנה (Rm) מהווים פרמטרים מרכזיים להערכת איכות השכבה הכפולה. ניתן לתאר את ה-PLB באמצעות מעגל שווה ערך של נגד-קבל (RC), שבו הממברנה מתנהגת כקבל במקביל לנגד34. הרכיב הקיבולי משקף את יכולתה של הממברנה לאגור מטען, בעוד שהרכיב ההתנגדותי משקף את חדירות היונים. יישום של צורת גל מתח משולשת יוצר תגובת זרם קיבולי בצורת ריבוע, שפרופורציונלית לקיבוליות הממברנה בהתאם ל:
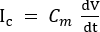 (1)
כאן, Cm הוא קיבול הממברנה, V הוא המתח המופעל, ו-t הוא הזמן. בעקבות היווצרות הממברנה, ערכי הקיבול עשויים לעלות עם הזמן עקב דלל הדרגתי של השכבה הכפולה35. בהתחשב בממברנה כקבל של לוחות מקבילים, הקיבול קשור לשטח הממברנה ולעוביה בהתאם ל:
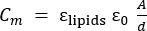 (2)
כאן, εlipids הוא קבוע הדיאלקטרי של ליבת הליפידים (~2), ε0 היא השמיות (permittivity) של החלל החופשי, A הוא שטח הממברנה, ו-d הוא עובי הממברנה36,37.
התנגדות הממברנה נקבעה באמצעות חוקו של אום33:
 (3)
כאן, V הוא המתח המופעל ו-Rm הוא התנגדות הממברנה. בהיעדרה של תעלות יונים, זרם הממברנה נשאר קרוב ל-0 pA, מה שמתאימה לערכי התנגדות בטווח של גיגה-אוהם (GΩ)33.
קשר ה-I–V שהופגן היה בעל התנהגות ליניארית (אוהמית) בין 0 ל-±200 mV עבור התקני BLMchipMM עם מפתח של 75 ו-100 µm. התאמה ליניארית של הנתונים הניבה ערכי התנגדות ממברנה של 847 ± 16 GΩ (n = 6) עבור מפתח של 75 µm (איור 8A, עיגולים) ו-980 ± 32 GΩ (n = 7) עבור מפתח של 100 µm (איור 8A, ריבועים). ערכי רעש RMS, שנמדדו על פני מקטעים של 3 s של עקומת הזרם, היו 3.1 ± 2 pA (n = 7) עבור מפתח של 100 µm ו-2.6 ± 0.1 pA (n = 6) עבור מפתח של 75 µm. יציבות הממברנה הוערכה על ידי מדידת התנגדות במרווחים של כ-2 min לאורך משך כולל של 1 h (איור 8B). ממברנות שנוצרו כראוי נשארו יציבות באופן עקבי למשך יותר מ-1 h, דבר המספיק לרוב הניסויים האלקטרופיזיולוגיים. הממברנות עמדו בדרך כלל בפוטנציאלים מופעלים של עד ±200 mV ללא סימני אי-יציבות, בעוד שפריצה התרחשה בין ±220 ל-±300 mV, תלוי בשכבה הכפולה הבודדת. ממברנות נחשבו למתאימות להחדרת חלבון כאשר ערכי הקיבול ranged מ-40 עד 60 pF עבור מפתחים של 75 µm ומ-60 עד 90 pF עבור מפתחים של 100 µm, עם ערכי זרם של ≤0.5 pA ב-100 mV.
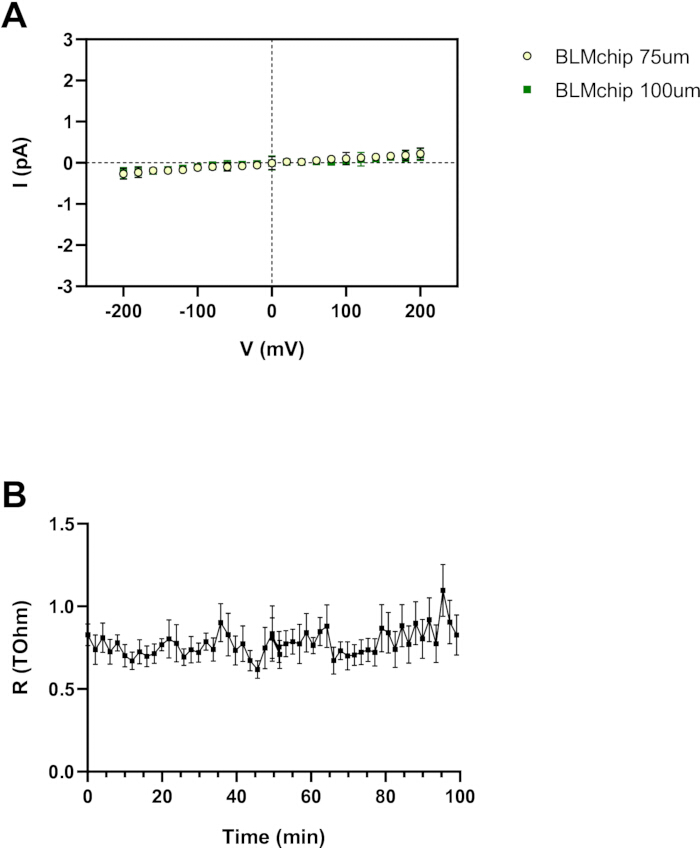
איור 8: אפיון חשמלי של PLBs. (A) קשרי זרם-מתח (I–V) של שכבות דו-שכבתיות שנוצרו במערכי נקבים של 75 µm ו-100 µm, המדגימים התנהגות לינארית (אומיות) בין ±200 mV. רגרסיה לינארית מניבה ערכי התנגדות של הממברנה של 847 ± 16 GΩ (n = 6) ו-980 ± 32 GΩ (n = 7), בהתאמה. (B) יציבות הממברנה הוערכה על ידי ניטור ההתנגדות לאורך שעה אחת במרווחי זמן של 2 min. הממברנות נשארות יציבות עד ±200 mV ונקרעות במתחים שבין ±220 ל-±300 mV. הנתונים מוצגים כממוצע ± טעות תקן של הממוצע (SEM). אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
אפיון ראשוני של התנהגות ערוץ בודד של ancTREK1
ancTREK1 סינתטי טוהרה ושוחלב לתוך PLBs, ופעילות של ערוץ בודד נוטרה באמצעות פרוטוקול של מדרגות מתח שנעו בין −120 ל-120 mV במרווחים של 20 mV. הקלטות של ערוץ בודד (איור 9A ו-איור 9B) חשפו את התנהגות הריצוד (flickering) האופיינית לערוצי K2P38. ב-80 mV, אמפליטודת הזרם הממוצעת הייתה 13.02 ± 0.78 pA (n = 5), ואילו ב-−80 mV עלתה אמפליטודת הזרם ל-−18.72 ± 0.25 pA (n = 5) (איור 9C). קשר ה-I–V שהתקבל הראה זרמי ערוץ בודד מדידים הן בפוטנציאלים חיוביים והן בשליליים בתנאי אשלגן סימטריים של 200 mM ללא Mg2+ (איור 9D). מאחר שאמפליטודות הזרם נאמדו מהיסטוגרמות של כל הנקודות (all-point histograms) מהקלטות שנרכשו בתדר של 5 kHz וסוננו בסינון מעביר נמוכים (low-pass) ב-2.5 kHz, קשר I–V זה מוצג כהוכחת עיקרון תיאורית ולא כמאפיין ביופיזי מקיף.
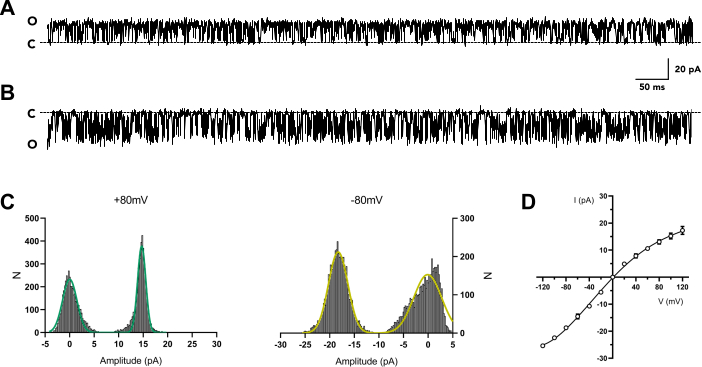
איור 9: פעילות של תעלה בודדת של ancTREK1 סינתטי. (A ו-B) עקבות זרם מייצגות של תעלה בודדת שנרשמו ב- 80 mV וב- −80 mV, בהתאמה. קווים מנוקדים מציינים את רמת התעלה הסגורה. (C) היסטוגרמות אמפליטודה של כל הנקודות עבור פוטנציאלים חיוביים (שמאל) ושליליים (ימין). (D) קשר I–V של ancTREK1 תחת תנאי אסימטריים של 200 mM אשלגן (K+) ללא קטיונים דו-ערכיים. העקומה הותאמה באמצעות פולינום מסדר רביעי, וערכי המוליכות נגזרו מהשיפוע ב- ±80 mV. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
למרות ש-ancTREK1 חסר את האזורים המורחבים של הקצוות N ו-C בהשוואה לתעלות TREK1 של יונקים, הוא נשאר פעיל תפקודית לאחר שחזור. בניגוד ל-TREK1 של יונקים, המציג מצבי מוליכות גבוהה ונמוכה (132 ± 5 pS ו-41 ± 5 pS בפוטנציאלים חיוביים, בהתאמה)39, ancTREK1 הפגין רק את מצב המוליכות הגבוהה. המוליכות של תעלה בודדת בפוטנציאלים חיוביים הייתה 112.8 ± 10.8 pS (80 mV, n = 5), בדומה לערכים שדווחו עבור תעלות TREK (85–130 pS בתנאי אשלגן סימטריים)38,39,40,41. בפוטנציאלים שליליים, המוליכות עלתה ל-205.6 ± 2.05 pS (−80 mV, n = 5), בהתאמה להתנהגות ה-TREK1 שדווחה בעבר39. באופן בולט, ancTREK1 הפגין הסתברות פתיחה מנורמלת (NPo) גבוהה יותר בהשוואה למדידות של TREK1 שהתקבלו באמצעות תצורות patch excised42. הקשר שבין NPo למתח הראה פעילות מוגברת של התעלה בפוטנציאלים חיוביים, שהגיעה ל-0.78 ± 0.02 (n = 5) ב-80 mV. לעומת זאת, ה-NPo ירד בפוטנציאלים שליליים, עם ערכים של 0.53 ± 0.04 ב-−80 mV ו-0.28 ± 0.03 ב-−120 mV (איור 10).
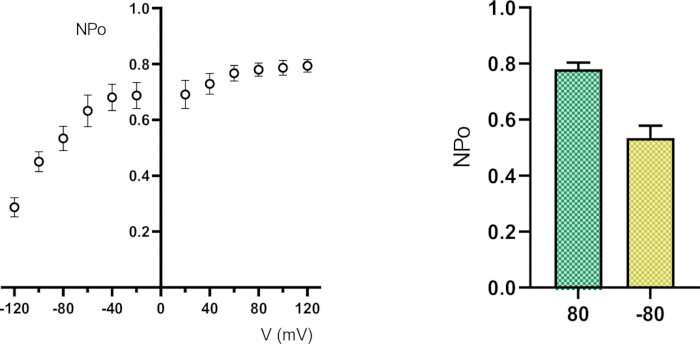
איור 10: ניתוח תלות במתח של פעילות תעלה בודדת של ancTREK1. הסתברות פתיחה מנורמלת (NPo) כפונקציה של פוטנציאל ממבנה (שמאל) והשוואה של NPo ב-80 mV וב-−80 mV (ימין), המראה על הגדלה בפתיחת התעלה בפוטנציאלים חיוביים. אנא לחץ כאן כדי לצפות בגרסה מורחבת של איור זה.
איור משלים 1. רצף חומצות האמינו של תעלת האשלגן בעלת שני תחומי נקב (K2P) הסינתטית הקדמונית (ancTREK1). רצף חומצות האמינו באורכו המלא של ancTREK1 ששימש להקלטות אלקטרופיזיולוגיות. הרצף שוחזר באמצעות הסקת רצף קדמונית מתוך סט נתונים נאחד של בני משפחת TREK/TRAAK, כולל רצפים אורתולוגיים שנאספו ממאגרי המידע UniProt ו-NCBI, סוננו עבור מוטיבים משמרים של הנקב, כוונות ונחקרו באמצעות פילוגנטיקה של נראות מקסימלית.אנא לחצו כאן להורדת קובץ זה.
דיון
במחקר זה, השתמשנו בטכניקת ה-PLB כדי להעריך את התכונות האלקטרופיזיולוגיות של תעלת K2P סינתטית ברמת המולקולה הבודדת. מבין מודלי השכבות השומניות המישוריות השונים המתוארים בספרות המדעית, התמקדנו ביצירת BLMs, שאתם נצבעות מעל פתח שקוטרו נע בין 50 ל-140 µm, שנקדח על פני שטח אנכי לא פולרי המפריד בין שני תאים מימיים. תצורה זו מאפשרת סימולציה של סביבת קרום התא תוך שמירה על שליטה בפרמטרים ניסיוניים, כולל הכנת קרום השומנים והרכב האלקטרוליט (למשל, עוצמה יונית ו-pH)3. שחזרנו BLMs באמצעות שיטת Montal–Mueller (קיפול)5, שבה הקרום מתגבש באופן ספונטני כאשר שתי שכבות שומנים בודדות (monolayers), שהופצו קודם לכן בממשק האוויר-מים של שני התמיסות המימיות, מתאחדות מעל הפתח על ידי העלאת מפלס המים.
הפרוטוקול המוצג כאן ליצירת ממברנה הוא אינטואיטיבי מאוד; עם זאת, מספר שלבים קריטיים משפיעים רבות על הצלחת הניסוי. כדי להבטיח חיבור חשמלי תקין בין ה-BLMchipMM לבין המגבר, חיוני למנוע כלורציה של קצוות חוטי ה-Ag/AgCl המוחדרים לשקעי ה-PCB. במהלך הרכבת ה-BLMchipMM, מיקום לא נכון של החוטים עלול להוביל למגע עם מארז המגבר, מה שיגרום לקצרים ורוויית אות. הליך הקדם-טיפול בפתח (aperture) הוא גורם קריטי נוסף: הפעלת כוח מופרז במהלך יישום תמיסת הקדם-טיפול עלולה לפגוע במחיצת הפוליאימיד, בעוד שטיפול לא נכון בתמיסת האלקטרוליט — ובמיוחד השריה של אזור הפתח — עלול לפגוע ביצירת הממברנה. יתרה מכך, ניקוי קפדני של תא ההקלטה של ה-BLMchipMM חיוני לשחזוריות התוצאות. שימוש ב-100% isopropyl alcohol, ולאחריו שטיפה יסודית וייבוש מלא, מבטיח ששאריות לא יפריעו לניסויים הבאים.
ניתן לבצע מספר שינויים בפרוטוקול. בעוד שהכלורציה באמצעות השריה במלבן מהווה גישה מעשית ונפוצה, ניתן להשתמש גם בשיטות חלופיות כגון ציפוי אלקטרולי43. באופן דומה, ניתן לבצע וריאציות בקדם-טיפול ובהכנת השומנים. תמיסות קדם-טיפול סטנדרטיות מורכבות בדרך כלל מאלקאנים בעלי שרשרת ארוכה המומסים בממיסים פחמימניים נדיפים36; למרות שתמיסת hexadecane בריכוז 1% ב-n-hexane נמצאת בשימוש נפוץ, ייתכן שממיסים אחרים יהיו מתאימים. ניתן להתאים גם את הרכב השומנים בהתאם לדרישות הניסוייות. בעוד ששומני DPhPC מספקים יציבות ממבריאן אופטימלית, ניתן להשתמש בתערובות שומנים חלופיות, כולל הרכבים טבעיים או סינתטיים36. יתרון מרכזי של שכבות שומן דו-שכבתיות אנכיות הנוצרות באמצעות שיטת הקיפול הוא היכולת לייצר ממברנות אסימטריות, שבהן כל עלה מורכב מסוגי שומנים שונים5,22, תכונה הידועה כמשפיעה על תפקוד חלבוני ממברנה.
פתרון בעיות ביצירת ממברנה כולל בדרך כלל התאמות של מפלסי הפאזה המימית. אם יצירת הממברנה אינה מתרחשת בתחילה, הורדה והעלאה חוזרות של מפלס הבאפר בתא אחד יכולות להקל על הרכבת השכבה הכפולה. במקרה של כישלון, הפעלת בועת אוויר מעל הפתח עשויה לקדם את התפלגות הליפידים ואת יצירת הממברנה. כישלון מתמשך מעיד בדרך כלל על בעיות הקשורות לקדם-טיפול או לזיהום, ובמקרה זה מומלץ לנקות את תא ההקלטה ולהפעיל מחדש את הניסוי.
המרכיבים המרכזיים של מערך זה כוללים את המגבר הקומפקטי eNPR 100 kHz ואת ה-BLMchipMM. המגבר הוא מערכת voltage-clamp קומפקטית עם רעש נמוך המבטלת את הצורך במכשירים חיצוניים נוספים, כולל כלובי פאראדיי חיצוניים, שכן מעטפת המגבר עצמה מספקת סיכוך אלקטרומגנטי יעיל. ה-BLMchipMM הוא תא הקלטה ממוזער ומורכב מראש, המשולב עם PCB לחיבור ישיר למגבר. הוא מורכב משני תאים בצורת C המופרדים על ידי מחיצת פוליאימיד עם פתח קוני שנקדח בלייזר, שם נוצרת הממברנה המלאכותית. הממדים המצומצמים של המערכת, עם נפחי תאים של כ-110 µL, מפחיתים משמעותית את צריכת הרכיבים ומקטינים את הקיבוליות העצמית, ובכך משפרים את איכות האות. בנוסף, ניתן להשתמש במכשיר מספר פעמים ללא פירוקו, ככל שנשמרים נהלי ניקוי נאותים, דבר המפחית את השונות ומשפר את השחזוריות הניסוית.
למרות יתרונות אלו, יש לקחת בחשבון מספר מגבלות. המערך הנוכחי אינו כולל מודולים משולבים לבקרת טמפרטורה, לחץ או פרפוזיה. דווח כי מתיחות ממברנה פנימית משפיעה על תעלות מכנו-סנסוריות כגון TREK144,45,46; עם זאת, המערך הנוכחי אינו כולל מניפולציה מבוקרת של מתיחות הממברנה, ולא הוסקו כאן מסקנות מכניסטיות. באופן כללי, פלטפורמה זו מספקת מערכת חזקה ונגישה להקלטת פעילות של תעלות יונים בממברנות מלאכותיות. במחקר זה, חקרנו את תעלת ה-K2P הסינתטית ancTREK1, תעלה אבקודית שנגזרה באופן חישובי של תת-משפחת TREK. הנתונים שהוקלטו מדגימים כי ancTREK1 מטוהר, אשר שוחזר לתוך PLBs, מציג התנהגות של תעלה בודדת העולה בקשריה עם תכונות מוליכות דמויות-TREK1 שדווחו בעבר. בתנאים סימטריים של 200 mM אשלגן ללא Mg2+, התעלה מציגה קשר I–V מדיד, עם ערכי אמפליטודה של כ-13 pA ב-80 mV ו-−19 pA ב-−80 mV. בנוסף, ancTREK1 מציגה את מצב המוליכות הגבוהה האופייני הנצפה בתעלות TREK1, עם מוליכות גבוהה יותר בפוטנציאלים שליליים (~205.6 pS) בהשוואה לפוטנציאלים חיוביים (~112.8 pS). באופן בולט, ancTREK1 מראה NPo מוגבר בפוטנציאלים חיוביים (0.78 ב-80 mV) ו-NPo מופחת בפוטנציאלים שליליים (0.53 ב-−80 mV ו-0.28 ב-−120 mV), דבר השונה מתצפיות בתצורות patch excised42. ממצאים אלו תומכים בשימוש במערכת זו להקלטת תעלות בודדות כהוכחת היתכנות (proof-of-principle) של חלבונים ממברנתיים משוחזרים.
גילויים
F.T. ו-A.P. הם המנכ"ל ועובד ב-Elements S.r.l., בהתאמה. כל שאר המחברים מצהירים כי אין להם ניגודי אינטרסים.
תודות
אנו מודים ל-Sofia Diletta Guzzeloni על העזרה בהליך הטרנספקציה של התאים. אנו מלאי הכרת תודה לעובדי Elements, ד"ר Leon Juarez וד"ר Michelangelo Paci. עבודה זו נתמכה על ידי המחלקה לרפואה מולקולרית של אוניברסיטת פאביה (University of Pavia), איטליה, במסגרת יוזמת Dipartimenti di Eccellenza (2023–2027), על ידי קרן Cariplo (#2019-1809) ועל ידי תוכנית המחקר PNRR CN00000013 "המרכז הלאומי ל-HPC, Big Data ומחשוב קוונטי" עבור M.L.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1,2-diphytanoyl-sn-glycero-3-phosphocholine (DPhPC) | Avanti Polar Lipids | 850356P | יצירת שכבות ליפידיות מלאכותיות דו-שכבתיות |
| 2-פרופנול (≥99.5%) | Honeywell | 24137-5L | ניקוי התקן BLMchipMM |
| אגרוז | Fisher BioReagents | BP160-500 | הכנת ג'לים של אגרוז |
| מערכת אלקטרופורזה אופקית בג'ל אגרוז | BTLabSystems | BT102 | הפרדה של מקטעי DNA |
| אמפיסילין | Fisher BioReagents | BP1760-25 | בחירת חיידקים שעברו טרנספורמציה |
| שרף Sepharose עם נוגדן ננו (nanobody) אנטי-GFP (הכנה עצמית) | — | — | טיהור במבוסס זיקה (Affinity purification) של חלבונים המסומנים ב-GFP |
| פספטאז אלקלי של Anza | Invitrogen | IVGN2208 | דה-פוספורילציה של וקטור |
| Anza EcoRI | Invitrogen | IVGN0116 | עיכול רסטריקציה |
| Anza NotI | Invitrogen | IVGN0014 | עיכול רסטריקציה |
| בופר Anza Red (10×) | Invitrogen | IVGN2008 | בופר לעיכול רסטריקציה |
| מעכב הפרוטאז אפרוטינין | Fisher Scientific | 15996008 | מניעת פירוק חלבונים |
| צנטריפוגה לשולחן מעבדה | Eppendorf | EP5420000164 | שיקוע תאי (pelleting) והכנת דגימות |
| BLMchipMM | Elements s.r.l. | — | היווצרות של שכבות ליפידיות מישוריות |
| כולסטריל המיסוקצינאט (CHS) | Anatrace | CH210 | ייצוב של חלבוני ממברנה |
| קומיסי כחול זוהר (Coomassie Brilliant Blue) | Sigma-Aldrich | 1125530025 | צביעת חלבונים |
| מלבין ביתי נפוץ | — | — | כלורין של חוטי Ag |
| DNase I | Sigma-Aldrich | 11284932001 | הפחתת צמיגות הליזאט |
| מים מזוקקים פעמיים | — | — | הכנת בופרים (תמיסות עיכוב) ותמיסות |
| אתנול (טהור, 99.9%) | Girelli Alcool s.r.l. | — | ניקוי חוטי Ag/AgCl |
| אתידיום ברומיד | Sigma-Aldrich | 1116080030 | צביעת DNA |
| נייר זכוכית בעל גרעיניות עדינה מאוד | — | — | הסרת ציפוי Ag/AgCl מחוטים |
| מגבר eNPR 100 kHz | Elements s.r.l. | — | הקלטות אלקטרופיזיולוגיות |
| ערכה לניקוי ג'ל (Gel-Out kit) להוצאת DNA מאגרקוזה | A&ביוטכנולוגיה | 023-250 | טיהור DNA |
| סולם DNA של 1 kb מבית GeneRuler | Thermo Fisher Scientific | SM0311 | סולם ייחוס לגודל DNA |
| סגנון חופשי™ 293-F | Thermo Fisher Scientific | R79007 | ביטוי של חלבון ancTREK1 |
| HEPES (≥99.5%) | Sigma-Aldrich | H3375-500G | חומר בופר |
| הקסדקאן (≥99%) | Sigma-Aldrich | H6703-100ML | טיפול מקדים של המפתח (Aperture) |
| הקסאן (≥99%) | Sigma-Aldrich | 139386-100ML | ממס ליפידים |
| ביתי 5× צבע טעינה ל-DNA | — | — | הכנת דגימת DNA |
| ביתי 6× בופר Laemmli SDS (מסייע לחמצון/reducing) | — | — | הכנת דגימות חלבון |
| תמיסת הסרת צבע ביתית | — | — | הסרת צבע מג'לים של SDS-PAGE |
| פרוטאז HRV-3C להכנה עצמית | — | — | שבירה של חלבוני היתוך |
| בופר הרצה ל-SDS-PAGE בהכנה ביתית (10×) | — | — | בופר אלקטרופורזה ל-SDS-PAGE |
| אימידזול | Alfa Aesar | A10221 | אלוציה של חלבונים בעלי תג His |
| עמודי טיהור בתוך-סדרה (In-batch) | — | — | תהליכי עבודה לניקוי חלבונים |
| אינקובטור עם ניעור Innova44 | New Brunswick Innova | M1282 | גידול תרביות תאים |
| KCl | Honeywell | 31248-1KG | הכנת אלקטרוליט ובופר |
| ציר LB (Lennox) | Condalab | 1231 | תרבית חיידקים |
| מעכב הפרוטאז Leupeptin | Thermo Scientific | 78435 | מניעת פירוק חלבונים |
| מגנזיום כלוריד הקסהידרט | Acros Organics | 447700010 | רכיב באפר (Buffer component) |
| ספקטרופוטומטר Nanodrop | DeNovix | DS-11 | כימות DNA וחלבון |
| n-דודציל-β-D-מלטוסיד (DDM) | NeoBiotech | NB-19-0056-25G | המסה של חלבוני ממברנה |
| שרף Ni Sepharose High Performance | Cytiva | 17526801 | טיהור באמצעות IMAC |
| מחשב נייד | — | — | בקרת מכשירים ורכישת נתונים |
| אולטרסנטריפוגה Optima LE-80K | Beckman | 365668 | בידוד פראקציית ממברנה |
| פנטאן (≥99%) | Sigma-Aldrich | 236705-100ML | ממיס ליפידים |
| מעכב הפרוטאוז פפסטטין A | Thermo Scientific | 78436 | מניעת פירוק חלבונים |
| בופר Phusion GC (5×) | Thermo Fisher Scientific | F519 | בופר PCR |
| Phusion High-Fidelity DNA Polymerase | Thermo Fisher Scientific | F530S | הגברה באמצעות PCR |
| מעכב הפרוטאז PMSF | Thermo Scientific | 36978 | הגנה על חלבונים במהלך ליזיס |
| פוליאתילנימין (PEI) | מדעי הקליניקה | 24765-100 | ריאגנט טרנספקציה |
| ג'ל Tris-Glycine מוכן מראש מבית ProteinEle (4–20%) | TransGen Biotech | DG101-01-V2 | הפרדת חלבונים |
| מערכת אלקטרופורזה של ג'ל SDS-PAGE | Bio-Rad | 1658002FC | אלקטרופורזה של חלבונים |
| נתרן בוטיראט | Fisher Scientific | A11079 | מגביר של ביטוי חלבונים |
| T4 DNA ligase | Thermo Fisher Scientific | EL0011 | ליגציה של DNA |
| בופר T4 DNA ligase (10×) | Thermo Fisher Scientific | B69 | תמיסת ליוגציה (Ligation buffer) |
| מכשיר תגובה בשרשרת עם מחזוריות תרמית (Mastercycler Nexus) | Eppendorf | 6331000025 | הגברה באמצעות PCR |
| Tris base | Sigma-Aldrich | T1503-1KG | הכנת תמיסות בופר |
| אגר Tryptone SOYA עם לציטין ופוליסורבט 80 | HiMedia | M449-5KG | זריעת חיידקים בצלחות פטרי |
| שני חטילי Ag | Elements s.r.l. | — | אלקטרודות לאלקטרופיזיולוגיה |
| מרכז סינון אולטרה-צנטריפוגי (סף חיתוך של 50 kDa) | Merck Amicon | UFC8050 | ריכוז חלבון |
| וקטור ביטוי pEG BacMam | Addgene | 160687 | ביטוי חלבונים |
| כבל USB | — | — | החיבור בין המגבר למחשב |
מקורות
- Wickenden, A. D. Overview of electrophysiological techniques. Curr Protoc Pharmacol. 11 (1), (2000).
- Polak, A., Mulej, B., Kramar, P. System for measuring planar lipid bilayer properties. J Membr Biol. 245 (10), 625-632 (2012).
- Zakharian, E. Recording of ion channel activity in planar lipid bilayer experiments. Methods Mol Biol. 998, 109-118 (2013).
- Mueller, P., Rudin, D., Tien, H. T., Wescott, W. C. Reconstitution of cell membrane structure in vitro and its transformation into an excitable system. Nature. 194, 979-980 (1962).
- Montal, M., Mueller, P. Formation of bimolecular membranes from lipid monolayers and a study of their electrical properties. Proc Natl Acad Sci U S A. 69 (12), 3561-3566 (1972).
- Coronado, R., Latorre, R. Phospholipid bilayers made from monolayers on patch-clamp pipettes. Biophys J. 43 (2), 231-236 (1983).
- Andersen, O. S. Ion movement through gramicidin A channels. Single-channel measurements at very high potentials. Biophys J. 41 (2), 119-133 (1983).
- Tank, D. W., Miller, C., Webb, W. W. Isolated-patch recording from liposomes containing functionally reconstituted chloride channels from Torpedo electroplax. Proc Natl Acad Sci U S A. 79 (24), 7749-7753 (1982).
- Criado, M., Keller, B. U. A membrane fusion strategy for single-channel recordings of membranes usually non-accessible to patch-clamp pipette electrodes. FEBS Lett. 224 (1), 172-176 (1987).
- Varnier, A., et al. A simple method for the reconstitution of membrane proteins into giant unilamellar vesicles. J Membr Biol. 233, 85-92 (2010).
- Garten, M., et al. Reconstitution of a transmembrane protein, the voltage-gated ion channel KvAP, into giant unilamellar vesicles for microscopy and patch clamp studies. J Vis Exp. (95), e52281 (2015).
- Funakoshi, K., Suzuki, H., Takeuchi, S. Lipid bilayer formation by contacting monolayers in a microfluidic device for membrane protein analysis. Anal Chem. 78 (24), 8169-8174 (2006).
- Heron, A. J., Thompson, J. R., Mason, A. E., Wallace, M. I. Direct detection of membrane channels from gels using water-in-oil droplet bilayers. J Am Chem Soc. 129 (51), 16042-16047 (2007).
- Iwamoto, M., Oiki, S. Contact bubble bilayers with flush drainage. Sci Rep. 5, 9110 (2015).
- Han, X., et al. Nanopore arrays for stable and functional free-standing lipid bilayers. Adv Mater. 19 (24), 4466-4470 (2007).
- Miyata, R., et al. Parallel recordings of transmembrane hERG channel currents based on solvent-free lipid bilayer microarray. Micromachines. 12 (1), 98 (2021).
- Kresak, S., Hianik, T., Naumann, R. L. C. Giga-seal solvent-free bilayer lipid membranes: from single nanopores to nanopore arrays. Soft Matter. 5 (20), 4021 (2009).
- Suzuki, H., Pioufle, B. L., Takeuchi, S. Ninety-six-well planar lipid bilayer chip for ion channel recording fabricated by hybrid stereolithography. Biomed Microdevices. 11, 17-22 (2009).
- Zagnoni, M., Sandison, M. E., Morgan, H. Microfluidic array platform for simultaneous lipid bilayer membrane formation. Biosens Bioelectron. 24 (5), 1235-1240 (2009).
- Baker, C. A., Bright, L. K., Aspinwall, C. A. Photolithographic fabrication of microapertures with well-defined, three-dimensional geometries for suspended lipid membrane studies. Anal Chem. 85 (19), 9078-9086 (2013).
- Tadaki, D., et al. Mechanically stable solvent-free lipid bilayers in nano- and micro-tapered apertures for reconstitution of cell-free synthesized hERG channels. Sci Rep. 7 (1), 17736 (2017).
- Collins, M. D., Keller, S. L. Tuning lipid mixtures to induce or suppress domain formation across leaflets of unsupported asymmetric bilayers. Proc Natl Acad Sci U S A. 105 (1), 124-128 (2008).
- Cohen, S. N., Chang, A. C. Y., Boyer, H. W., Helling, R. B. Construction of biologically functional bacterial plasmids in vitro. Proc Natl Acad Sci U S A. 70 (11), 3240-3244 (1973).
- Hoseini, S., Sauer, M. G. Molecular cloning using polymerase chain reaction, an educational guide for cellular engineering. J Biol Eng. 9 (1), 2 (2015).
- Goehring, A., et al. Screening and large-scale expression of membrane proteins in mammalian cells for structural studies. Nat Protoc. 9 (11), 2574-2585 (2014).
- Kawate, T., Gouaux, E. Fluorescence-detection size-exclusion chromatography for precrystallization screening of integral membrane proteins. Structure. 14 (4), 673-681 (2006).
- Porath, J., Carlsson, J., Olsson, I., Belfrage, G. Metal chelate affinity chromatography, a new approach to protein fractionation. Nature. 258 (5536), 598-599 (1975).
- Hochuli, E., Dobeli, H., Schacher, A. New metal chelate adsorbent selective for proteins and peptides containing neighbouring histidine residues. J Chromatogr A. 411, 177-184 (1987).
- Hochuli, E., et al. Genetic approach to facilitate purification of recombinant proteins with a novel metal chelate adsorbent. Biotechnology (N Y). 6 (11), 1321-1325 (1988).
- Kirchhofer, A., et al. Modulation of protein properties in living cells using nanobodies. Nat Struct Mol Biol. 17 (1), 133-138 (2010).
- Kubala, M. H., Kovtun, O., Alexandrov, K., Collins, B. M. Structural and thermodynamic analysis of the GFP:GFP-nanobody complex. Protein Sci. 19 (12), 2389-2401 (2010).
- Lee, H., Lolicato, M., Arrigoni, C., Minor, D. L. Production of K2P2.1 (TREK-1) for structural studies. Methods Enzymol. 653, 151-188 (2021).
- Kramar, P., Miklavcic, D., Kotulska, M., Lebar, A. M. Voltage- and current-clamp methods for determination of planar lipid bilayer properties. Adv Planar Lipid Bilayers Liposomes. 11, 29-69 (2010).
- Golowasch, J., Nadim, F. Capacitance, membrane. Encyclopedia of Computational Neuroscience. , (2014).
- Niles, W. D., Levis, R. A., Cohen, F. S. Planar bilayer membranes made from phospholipid monolayers form by a thinning process. Biophys J. 53 (3), 327-335 (1988).
- Gutsmann, T., et al. Protein reconstitution into freestanding planar lipid membranes for electrophysiological characterization. Nat Protoc. 10 (1), 188-198 (2015).
- White, S. H. A study of lipid bilayer membrane stability using precise measurements of specific capacitance. Biophys J. 10 (12), 1127-1148 (1970).
- Bockenhauer, D., Zilberberg, N., Goldstein, S. A. N. KCNK2: reversible conversion of a hippocampal potassium leak into a voltage-dependent channel. Nat Neurosci. 4 (5), 486-491 (2001).
- Li, X. T., et al. The stretch-activated potassium channel TREK-1 in rat cardiac ventricular muscle. Cardiovasc Res. 69 (1), 86-97 (2006).
- Honoré, E., Maingret, F., Lazdunski, M., Patel, A. J. An intracellular proton sensor commands lipid- and mechano-gating of the K+ channel TREK-1. EMBO J. 21 (12), 2968-2976 (2002).
- Patel, A. J., et al. A mammalian two pore domain mechano-gated S-like K+ channel. EMBO J. 17 (15), 4283-4290 (1998).
- Maingret, F., Honore, E., Lazdunski, M., Patel, A. J. Molecular basis of the voltage-dependent gating of TREK-1, a mechano-sensitive K+ channel. Biochem Biophys Res Commun. 292 (2), 339-346 (2002).
- Lemtiri-Chlieh, F., Ali, R. Characterization of heterologously expressed transporter genes by patch- and voltage-clamp methods: application to cyclic nucleotide-dependent responses. Methods Mol Biol. 1016, 67-93 (2013).
- Opsahl, L. R., Webb, W. W. Lipid-glass adhesion in giga-sealed patch-clamped membranes. Biophys J. 66 (1), 75-79 (1994).
- Perez-Mitta, G., MacKinnon, R. Freestanding lipid bilayer tensiometer for the study of mechanosensitive ion channels. Proc Natl Acad Sci U S A. 120 (12), e2221541120 (2023).
- Sorum, B., et al. Tension activation of mechanosensitive two-pore domain K+ channels TRAAK, TREK-1, and TREK-2. Nat Commun. 15 (1), 3142 (2024).
הדפסות חוזרות והרשאות
