באמצעות הדמיית טיימ-לפס, ניתן לעקוב אחר תהליך ההתחדשות המלא של ספרואידים של הידרה . פרוטוקול זה מתאר את יצירת ספרואידים של הידרה , דן במגוון אסטרטגיות התקנה, ומפרט כיצד לבצע הדמיה חיה ארוכת טווח באמצעות מיקרוסקופ קונפוקלי של דיסק מסתובב וכן מיקרוסקופיית פלואורסצנציה של יריעת אור.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
במאמר זה
סיכום
תקציר
הידרה ידועה ביכולת ההתחדשות יוצאת הדופן שלה. באופן מדהים, שברים קטנים מתחדשים של רקמת הידרה , הנקראים ספרואידים של הידרה , יכולים ליצור מארגן דה נובו. לאחר ההקמה, מארגן זה מכוון את הרקמה הסובבת להתמיין למבנים אוראליים מתאימים. בתוך ימים, הספרואיד יכול להתפתח לפוליפ קטן אך עם דפוס מלא. טווח הזמן הקצר יחסית של תהליך זה מאפשר הדמיית טיים-לאפס רציפה של כל התהליך, ומציע הזדמנות ייחודית לחקור את הדינמיקה המרחבית-זמנית של התחדשות. כאן אנו מציגים תהליך עבודה מפורט ומציגים תוצאות מייצגות ליצירת מערכי נתונים טיים-לאפס של ספרואידים מתחדשים של הידרה . הפרוטוקול כולל הליך מפורט ליצירת ספרואיד והנחיות לבחירת דגימות אופטימליות להדמיה. אנו דנים באסטרטגיות הרכבה המתאימות להדמיה ארוכת טווח של דגימות חיות ומדגימים גישות הדמיה באמצעות מיקרוסקופים קונפוקליים של דיסק מסתובב ומיקרוסקופים של יריעת אור. העקרונות המתוארים כאן רלוונטיים באופן רחב למערכות מודל אחרות שבהן ניתן לחקור תהליכים מורפוגנטיים דינמיים באמצעות דימות ארוך טווח.
מבוא
הידרה היא פוליפ קטן במים מתוקים, הידוע בעיקר בזכות יכולתו הרגנרטיבית יוצאת הדופן. קטעי רקמה שנכרתו ממרכז הגוף מתקפלים לספירואיד חלול המורכב משתי שכבות האפיתל של הידרה, האקטודרם והאנדודרם. במהלך ההתחדשות, ספרואידים של הידרה יוצרים מארגן de novo1. בתוך כ-3 ימים, ציר הגוף מתארך, ותאים בגפרי הראש וכף הרגל מתממיינים. בגלל פרק הזמן הקצר יחסית הזה, ניתן לתעד את כל תהליך ההתחדשות באמצעות הדמיה חיה. מערכי נתוני טיימ-לאפס היו חיוניים בחשיפת מחזורי האינפלציה וההדפלציה האופייניים שעוברים ספרואידים של הידרה במהלך רגנרציה2. המתיחה של הרקמה שנוצרת על ידי תנודות מכניות מונעות אוסמוטית תורמות למיקום המארגן3.
הדמיה חיה מוצלחת לטווח ארוך דורשת רכישת תמונה מהירה כדי למנוע ארטיפקטים של תנועה, ובמקביל למזעור חשיפה לאור כדי למנוע נזק פוטוגרפי לדגימה. מיקרוסקופיה קונפוקלית סורקת בנקודה אחת קלאסית אינה עומדת בדרישות אלו. עם זאת, פותחו טכניקות מתקדמות. בפרוטוקול זה נתמקד בשתי שיטות פופולריות מאוד: מיקרוסקופיה קונפוקלית של דיסק מסתובב (SDCM) ומיקרוסקופיית פלואורסצנציה אורית (LSFM). SDCM משתמש בדיסק מסתובב במהירות עם מערךשל חורים 4. עיצוב זה מאפשר עירוי וזיהוי סימולטני של מספר נקודות בתוך הדגימה, תוך שמירה על קונפוקליות. רכישה מקבילה זו מאיצה מאוד את ההדמיה, וכך מאפשרת לכידת דגימות נעות ללא תנועה. כיתרון נוסף, החשיפה המקוצרת מפחיתה משמעותית את הפוטוטוקסיות. עם זאת, בשל עומק דימות מוגבל, הדמיה חיה של מבנים גדולים יותר היא מאתגרת.
LSFM נגזר מהיריעה הדקה של האור המשמשת לעורר פלואורופורים רק במישורזה. בניגוד לחור סיכה, שמייצר רזולוציה צירית על ידי הגבלת האור הנפלט שנגלה, מיקרוסקופים מסוג יריעת אור קובעים רזולוציה צירית על ידי הגבלת הנפח המעורר במקום. מטרת הגילוי ממוקמת באופן אורתוגוני, אוספת פלואורסצנציה בזווית של 90° ללוח האור. זה מאפשר למצלמה לאסוף את אות הפלואורסצנציה מכל המישור המואר בחשיפה אחת, מה שמגביר את מהירות הקליטה ומפחית את הפוטוטוקסיות. גיאומטריות נפוצות של LSFM שנבנות סביב אובייקט זיהוי אחד או שניים ממוקמים אופקית מעניקות יתרון נוסף בכך שניתן לצלם את אותה דגימה מזוויות שונות. אם המיקרוסקופ מצויד בשני מטרות גילוי, ניתן לצלם דגימות בו-זמנית משני צדדים6. לחילופין, ניתן להפוך דגימה כדי לקבל תצוגות מזוויות שונות.
טכניקות הדמיה ששימשו לחקר הידרה חיה התקדמו משמעותית בשנים האחרונות, ומאפשרות תצפית על שינויים מורפולוגיים הקשורים להתחדשות עד לדינמיקת פעילות נוירונית 7,8,9,10. כאן, אנו מרחיבים את הפרוטוקוליםשפורסמו בעבר 6,11, עם דגש על הדגמת הגישות המגוונות להדמיה חיה של ספרואידים מתחדשים של הידרה. אנו מתארים שיטות ליצירת ספרואידים של הידרה מחלקי רקמה קטנים ומספקים הנחיות לזיהוי דגימות מקופלות כראוי. הוראות שלב אחר שלב מפורטות לשלוש אסטרטגיות התקנה הנפוצות להדמיה חיה. להדמיה במיקרוסקופ הפוך, גאומטריה נפוצה ב-SDCM, ספרואידים מותקנים בדרך כלל בבארות אגרוז. זה מאפשר להם לנוע ולהסתובב בחופשיות תוך שמירה על שדה הראייה. פלואורואתילן פרופילן (FEP) משמש בדרך כלל להתקנה מכיוון שמקדם השבירה שלו (1.34) קרוב למים (1.33). נייר אלומיניום FEP יכול להיות תרמופורם לתאי הדמיה מותאמים אישית, המותאמים לצרכים ניסיוניים ספציפיים. באופן דומה, הטמעת ספרואידים באגרוז בתוך נימי זכוכית היא גישה סטנדרטית ל-LSFM. למרות שטכניקה זו מגבילה את מספר הדגימות לכל נימים, היא מקלה על הסיבוב הנדרש לגילוי רב-זוויות. לבסוף, אנו מדגימים כיצד לבצע הדמיה חיה באמצעות SDCM ו-LSFM, ונדון בשיקולים מרכזיים לבחירת הטכניקה המתאימה בהתאם למטרות הניסוי. למרות שפרוטוקול זה מותאם להידרה, עקרונותיו הבסיסיים ישימים באופן רחב על מערכות מודל אחרות התלויות בהדמיה ארוכת טווח לחקר תהליכים מורפוגנטיים דינמיים.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל ההליכים שתוארו בוצעו בהתאם להנחיות האתיות של התקנות הלאומיות השווייצריות למחקר בעלי חיים. לפני תחילת הניסוי, יש להאכיל את הידרה כרגיל, 3 פעמים בשבוע, לפחות לשבועיים. ההידרה ששימשה לניסויים צריכה להיות בריאה12, ללא איברי מין וללא נביטות. הידרה שניצנה לאחרונה, שניתן לזהות אותה בזכות אורכה הקצר יותר בהשוואה להידרות אחרות במושבה, יש להימנע ממנה.
1. הכנת ספרואידים של הידרה (איור 1)
- התחל בהכנת צלחת עם מדיום דיסוציאציה (DM; למתכון ראו טבלה 1). המנחה אמור להיות בטמפרטורת החדר בזמן הניסוי.
- הכינו את שאר מרחב העבודה: הניחו את מכסה תבנית תרבית התאים בקוטר 10 ס"מ מתחת לסטריאוסקופ ומלאו אותו בשכבת מדיום הידרה (HM; למתכון ראו טבלה 1). צלחת תרבית התאים עצמה יכולה לשמש לאיסוף רקמות הידרה שנותרו. לבסוף, אסוף את הידרה והניח אותם בצלחת קרוב לסטריאוסקופ.
- השתמש בפיפטה זכוכית של פסטר כדי להזיז הידרה למכסה מתחת לסטריאוסקופ. מומלץ להקהות פיפטות פסטר. כדי להשיג זאת, החזק במהירות את הקצה בלהבה.
- לעיתים קרובות, הידרה צפה על פני השטח של המדיום; תחזיר את ההידרה עד שהיא שוקעת לתחתית המכסה.
- חצו את ההידרה על ידי יצירת חתך ישר יחיד בין אזורי הגוף B2 ו-B3 (איור 1A,B). היה עקבי בחלק הגוף שממנו נחתכים הספרואידים, שכן זה משפיע מאוד על התנהגות הספרואידים.
הערה: אם אין צורך לחתוך באיבר מסוים בגוף, השתמש בכדורים מהאמצע של ציר הגוף. לבעלי חיים עם פנוטיפ חזק (למשל, בעלי חיים עם ראשים חוץ-רחמיים רבים), חפשו אזורים בגוף שמזכירים הכי טוב את מרכז ציר הגוף. - חכה עד שהידרה תהיה רגועה לגמרי אחרי החיתוך. אם צריך, יש להשתמש בחלקי גוף צפים בחזרה כדי לגרום להם לשקוע שוב.
- כאשר הרקמה המחולקת נרגעה, הקצה החתוך של הרקמה יישאר נפוח. בצע חתך שני במקום שבו הנפיחות מסתיימת כדי ליצור טבעת רקמה (איור 1C). ניתן לחתוך טבעות רקמה מכל חצאי הידרה .
- הסר את קצות הראש והרגל שנותרו מהמכסה. ניתן להשאיר את חלקי הגוף שנותרו להתחדש. לאחר שההידרה התחדשו כראוי וקיבלו אוכל לפחות שבועיים, ניתן להשתמש בהם לניסויים נוספים.
- חתוך את טבעות הרקמה. חתוך את הטבעות הפתוחות למספר חתיכות רקמה (איור 1D). כוון לחתיכות רקמה מלבניות בגודל ~100-150 מיקרון על ~300-500 מיקרון.
הערה: מספר החלקים שניתן לחתוך בכל טבעת משתנה. לדוגמה, הידרות מהזן 105 בדרך כלל דקות בהרבה מהידרות מהזן AEP. אם טבעת רקמה קטנה מדי ליצירת שתי חתיכות רקמה מתאימות, גזמו את הטבעת הפתוחה כדי ליצור חתיכת רקמה בגודל מתאים והשליכו את החלק הקטן השני. - העבר את חלקי הרקמה ל-DM בטמפרטורת החדר. מזער את כמות ה-HM שמוזזת יחד עם חלקי הרקמה.
- תשאיר את הספרואידים להתקפל ב-DM ל-3-4 שעות. בדוק אם הספרואידים התקפלו כראוי. ספרואידים שמקופלים בהצלחה צריכים להיות בעלי צורה מעוגלת ולהיות מכוסים לחלוטין באקטודרם (איור 2A-D).
הערה: אם יותר מחצי מהספרואידים עדיין לא הצליחו להתקפל, השאירו את הספרואידים ב-DM לעוד 30 דקות. - בחרו ספרואידים מקופלים בקוטר 250-350 מיקרון (איור 2E-H). הימנע מספרואידים המזוהמים בחומרים חיצוניים כמו סיבי פלסטיק. העבר את הספרואידים שנבחרו ל-HM לפני ההתקנה.
הערה: אם הניסוי יתבצע במדיום עם תוספת (למשל, טיפול תרופתי), העבר את הספרואידים מיד לתוך המדיום הזה במקום. תזכור שברגע שהספרואידים מועברים ל-HM, הם יתחילו להתנדנד.
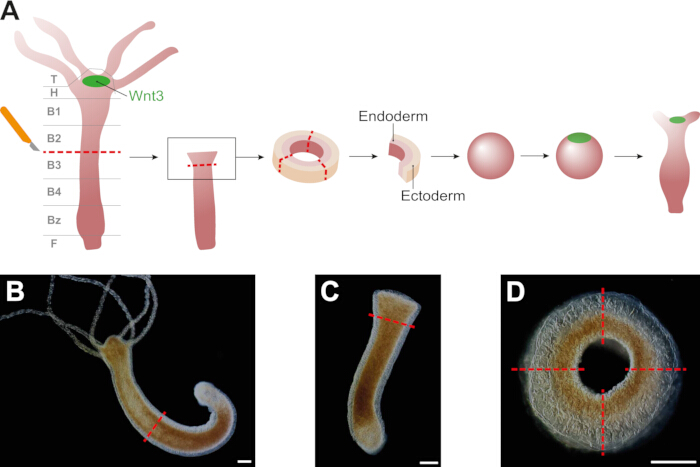
איור 1: הכנת כדורי הידרה . (א) סכמטי המראה את דור הספרואידים של הידרה . ספרואידים שוברים סימטריה על ידי הקמת מארגן Wnt3+ מחדש שמניע את היווצרות, הארכה ודיפרנציאציה של הציר. (B) החיתוך הראשון מתבצע במרכז הגוף, בגבול בין אזורים B2 ו-B3, כפי שמצוין ב-(A). (ג) כל חצי שנוצר נחתך שוב ממש מתחת לאזור הנפוח. (ד) טבעות הרקמה שנוצרו נחתכות ומחולקות ל-2-4 חתיכות רקמה בהתאם לגודל הטבעת. פסי קנה מידה: 250 מיקרון. אנא לחצו כאן לצפייה בגרסה גדולה יותר של הדמות הזו.
| מדיום | הרכב | טמפרטורת אחסון | ||
| מדיום דיסוציאציה (DM) | 3.6 מילימטר KCl, 6 מילימטר CaCl2, 1.2 מילימטר MgSO4, 6 מילימטר נתרן ציטראט, 6 מילימטר נתרן פירובאט, 4 מילימטר גלוקוז, ו-12.5 מילימטר TES (pH 6.9) | 4 מעלות צלזיוס | ||
| מדיום הידרה (HM) | 1 mM CaCl2, 0.2 mM NaHCO3, 0.02 mM KCl, 0.02 mM MgCl2, ו-0.2 mM tris-HCl (pH 7.4) | טמפרטורת החדר | ||
טבלה 1: קומפוזיציות מדיה ואחסון.
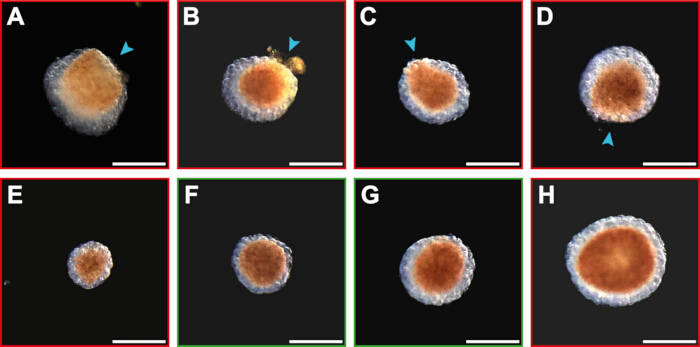
איור 2: סקירה של ספרואידים פתוחים ומקופלים. (A-D) ספרואידים מקופלים מסודרים ממקופל פחות ועד כמעט מקופלים לחלוטין. ספרואידים פתוחים מזוהים על ידי אזור שבו האקטודרם אינו מכסה את האנדודרם (מסומן על ידי ראשי חץ כחולים). (ה) דוגמה לספרואיד שהוא קטן מדי. (F-G) ספרואידים מקופלים בגודל אופטימלי (250-350 מיקרון). (ח) דוגמה לספרואיד שהוא גדול מדי. התמונות צולמו בפלטת הדמיה עם 4 בארות עם תחתית זכוכית באמצעות מיקרוסקופ היברידי Revolve של Echo (RVL2-K), תוך שימוש במצב הפוך עם אובייקטיב 4.0x ומצלמת אור שידור (צבע). פסי קנה מידה: 250 מיקרון. אנא לחצו כאן לצפייה בגרסה גדולה יותר של הדמות הזו.
2. אסטרטגיות רכיבה
הערה: השילוב בין פריסת המיקרוסקופ לעיצוב הניסוי קובע את אסטרטגיית ההרכבה המתאימה ביותר לניסוי. כאן אנו מתארים מגוון טכניקות התקנה שניתן להשתמש בהן ליישומים מגוונים.
- התקנה בבארות אגרוז (איור 3A)
- הכינו 1% אגרוז ב-HM על ידי הרתחת התערובת עד שהאגרוז נמס לחלוטין.
הערה: ניתן להכין מראש מלאי של 1% אגרוז ולאחסן בבקבוק זכוכית סגור היטב למשך חודש. אנו ממליצים לא לחמם את האגרוז יותר מ-5 פעמים. עם זאת, יש להכין את בארות האגרוז ביום הניסוי. - בעוד שהאגרוז עדיין נוזלי, ציפו לחלוטין את תחתית לוח הדמיה עם 4 בארות בשכבה בעובי 2 מ"מ.
הערה: לוחות הדמיה אחרים עשויים להתאים גם הם בהתאם למבנה ההדמיה ולמספר המצבים שיש לבדוק. בניסויים עם טיפול, הקפידו לפצות על האגרוז. כימיקלים תרמוסטביליים יכולים להיות מעורבבים ישירות לאגרוז. הכין תמיסה של 2% אגרוז, ואחרי הרתיחה, ערבב עם תמיסה כפולה של הכימיקל הרצוי. כיסה את האגרוז בתמיסה של 1x כרגיל. אם הכימיקל אינו יציב תרמוסטלי, כוונו את ריכוז הכימיקל בהתחשב בנפח האגרוז בלוח ההדמיה, והשתמשו בתמיסה זו כדי לכסות את האגרוז. - השאירו את האגרוז לשקוע לגמרי. לאחר מכן, צור בארות באגרוזה. השאירו לפחות 10 מ"מ של אגרוז בין כל אחת מהבארות כדי להבטיח את שלמותן המבנית.
- בעת החזקת הבוכנה, לחץ את קצה פיפטת P1000 לתוך האגרוז עד שהיא נוגעת בתחתית לוח ההדמיה.
הערה: גודל בארות האגרוז ניתן לכוונון, למשל, באמצעות קצה בגודל שונה או באמצעות חותמת. חשוב שלדגימות יהיה מספיק מקום לזוז. - החזק את הפיפטה ישר למעלה והתחבר לתחתית פלטת ההדמיה. לאחר מכן, זז וסובב את קצה הפיפטה כדי לחתוך את האגרוזה.
- שחרר את הבוכנה של הפיפטה ובמקביל הסר את קצה הפיפטה באיטיות מהאגרוז על ידי הזזת הפיפטה ישר כלפי מעלה.
- בעת החזקת הבוכנה, לחץ את קצה פיפטת P1000 לתוך האגרוז עד שהיא נוגעת בתחתית לוח ההדמיה.
- חזור על תהליך יצירת הבארות עד שנוצרו מספיק בארות. אם הפיפטה מוסרת מהר מדי או שהאגרוז לא נחתך במלואה לפני ההסרה, חלק מהאגרוז יישאר בתחתית הבאר. הימנעו משימוש בבארות אלו כי הן ישפיעו על איכות ההדמיה.
- כסו את האגרוז בשכבה דקה של HM. כדי למנוע אידוי של המדיום, השתמשו בלוח הדמיה עם מכסה.
- שחרר בועות אוויר שייתכן שנוצרו בבארות האגרוז על ידי נגיעה בבועות האוויר עם קצה פיפטה P20.
- הזז את ספרואידי הידרה אחד אחד ללוח ההדמיה. אם ספרואיד לא נופל מיד לבאר, כוון אותו לכיוון הבאר על ידי דחיפה עדינה של הספרואיד עם הפיפטה.
הערה: שני ספרואידים עלולים להסתיים באותו באר. הסר את שני הספרואידים לפי שאיפה ונסה להרכיב אותם שוב. שים לב ששאיפת הספרואידים עלולה לגרום לנזק לספרואידים ו/או לבאר האגרוז. אם זה קורה, תמשיך להשתמש בספרואידים חדשים ובארות שונים. - דמיין את הדגימות על מיקרוסקופ הפוך (איור 4A).
- הכינו 1% אגרוז ב-HM על ידי הרתחת התערובת עד שהאגרוז נמס לחלוטין.
- התקנה בבארות FEP (איור 3B)
- הכינו פיפטות זכוכית מותאמות אישית שישמשו להסרת בועות אוויר מבארות ה-FEP (איור משלים 1).
- חממו פיפטת זכוכית של פסטר בלהבה במקום שבו ניתן להחזיק את קצה הקצה. תמשיך לסובב את הפיפטה כדי להתחמם באופן אחיד.
- ברגע שהזכוכית מתחילה להתרכך, מותחים במהירות את קצה הפיפטה תוך כדי הוצאת הפיפטה מהלהבה.
- שברו את האזור המדולל כדי ליצור קצה פיפטה חדש בגודל של כ-0.4-0.5 מ"מ. לגעת במהירות בקצה הפיפטה בלהבה כדי לטשטש אותה; ודא שזה לא סוגר את הפיפטה.
- חממו את פיפטת פסטר הזכוכית במקום שבו הפיפטה מתרחבת. אל תסובב את הפיפטה, אלא תזיז אותה מהלהבה כשהקצה מתחיל לשקוע. החזק את הפיפטה אופקית עד שהיא מתקשה בצורת L.
- צור תאי FEP על ידי יריעת FEP תרמופורמית בוואקום מעל תבניות אלומיניום מותאמות אישית6. מידות התבניות ניתנות להתאמה לגודל דגימות או לתאי מיקרוסקופ שונים. עבור ספרואידים של הידרה , בארות בקוטר 0.5 מ"מ הן המתאימות ביותר.
- חתכו את נייר ה-FEP ללוחות בגודל 15 על 15 ס"מ. מהדק את נייר ה-FEP בתוך המכונה התרמופורמית וחמם אותה במשך 8 דקות.
- הנח את תבניות האלומיניום מתחת לנייר האלומיניום. בוואקום, צור את נייר האלומיניום סביב התבניות למשך 30 שניות.
- חתכו ידנית את התאים מהנייר כסף FEP התרמופורמית.
- הפוך את תא ה-FEP ללא אבק באמצעות אוויר משומר. מלא את תא ה-FEP ב-HM.
הערה: בדרך כלל, לתאי FEP אין מכסה. זה אומר שחלק מהמדיום יתאדה במהלך ההדמיה. אם אידוי המדיום יגרום לבעיות, תכנן תא שניתן לסגור - שחרר בועות אוויר מהבארות באמצעות פיפטות זכוכית שהוכנו מראש. השתמש בתנועת סקופינג כדי לדחוף את בועת האוויר החוצה מהבאר עם קצה הפיפטה.
- לאחר שכל הבארות נקיות מבועות, העבר את ספרואידי הידרה אחד אחד לתא ה-FEP. אם ספרואיד לא נופל לבאר, דחף אותו פנימה עם פיפטה.
הערה: אם שני ספרואידים נופלים לאותו באר, הסר את שניהם באמצעות שאיבת פיפטות והתקן אותם מחדש. עיצוב בארות ה-FEP יקבע איזה סוג מיקרוסקופ יש להשתמש בהדמיה. באופן כללי, מיקרוסקופים עם מטרת גילוי אחת או כמה ממוקמות אופקית מתאימים (איור 4B).
- הכינו פיפטות זכוכית מותאמות אישית שישמשו להסרת בועות אוויר מבארות ה-FEP (איור משלים 1).
- התקנה מוטמעת באגרוז בנימי זכוכית (איור 3C)
- הכינו 1% אגרוז בעל נקודת התכה נמוכה ב-HM על ידי הרתיחת התערובת עד שהאגרוז בעל נקודת ההתכה הנמוכה נמס לחלוטין. העבר 1 מ"ל אגרוז נוזלי לצינור מיקרוצנטריפוגה.
הערה: ניתן להכין מראש מלאי של אגרוז בעל נקודת התכה נמוכה של 1% ולאחסן בבקבוק זכוכית סגור היטב למשך חודש. במידת הצורך, ניתן לשמור על האגרוז במצב נוזלי על ידי שמירה על טמפרטורה של 37 מעלות צלזיוס. עם זאת, אין לחמם את האגרוז באופן פעיל מיד לאחר הוספת דגימות. שקול להוסיף לאגרוז טיפול (ראה שלב פרוטוקול 2.1.2) או חרוזים פלואורסצנטיים בשלב זה. החרוזים יכולים לשמש לשחזור רב-תצוגתי. - העבר 2-4 ספרואידים לאגרוז. הכנסת מוט בוכנה במלואה לתוך נימי זכוכית; מוט הבוכנה אמור להתאים היטב.
- מכניסים את קצה הנמים לתוך האגרוז, ועל ידי משיכה איטית של מוט הבוכנה למעלה, מושכים את האגרוז כלפי מעלה אל תוך הנימים. תתחיל לשאוף קצת אגרוז בלי ספרואידים, ואז בלי לעצור, טען את הספרואידים המוטמעים באגרוזות אל תוך הנימים.
הערה: לתוצאות הדמיה מיטביות, יש להפריד היטב את הספרואידים הבודדים ולמוקם בתחתית עמודת האגרוז (איור 3C).
- הכינו 1% אגרוז בעל נקודת התכה נמוכה ב-HM על ידי הרתיחת התערובת עד שהאגרוז בעל נקודת ההתכה הנמוכה נמס לחלוטין. העבר 1 מ"ל אגרוז נוזלי לצינור מיקרוצנטריפוגה.
- הוציאו את הנמים מהאגרוז ונקו את החלק החיצוני בנייר טישו. החזק את הנימי אופקי וסובב אותו עד שהאגרוז מתקשה; זה יעזור לשמור על הספרואידים במרכז עמודת האגרוז.
- הנח את הנימים המלאים באגרוז ב-HM כדי לשמור על הדגימות מיובות. דגימות המותקנות בנימי זכוכית צריכות להיות מדימות באמצעות מיקרוסקופ עם מטרת גילוי אחת או כמה ממוקמות אופקית (איור 4C).
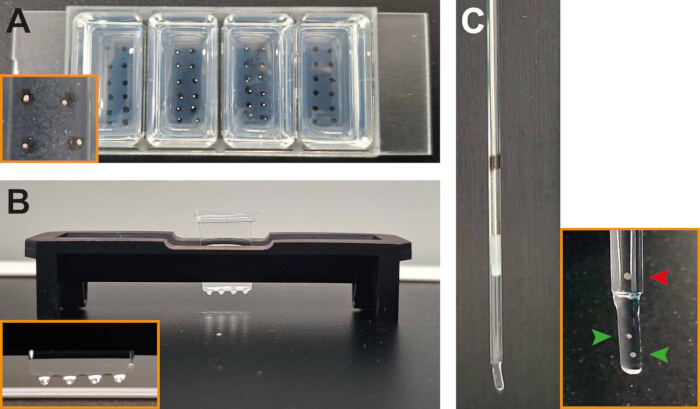
איור 3: התקנת ספרואידים של הידרה להדמיה חיה. (א) בארות אגרוז עם (שני חדרים אמצעיים) וללא (חדרים חיצוניים) ספרואידים. (B) ספרואידים המותקנים בבארות FEP. (ג) ספרואידים מוטמעים באגרוז ומותקנים בנימי זכוכית. להדמיה, עמוד האגרוז נדחף מעט החוצה מתוך נימי הזכוכית. לכן, יש למקם את הספרואידים קרוב לתחתית עמוד האגרוז (ראשי חץ ירוקים), תוך שמירה על הפרדה טובה. ספרואידים הממוקמים רחוק מדי מהתחתית (ראש החץ האדום) אינם ניתנים להדמיה יעילה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
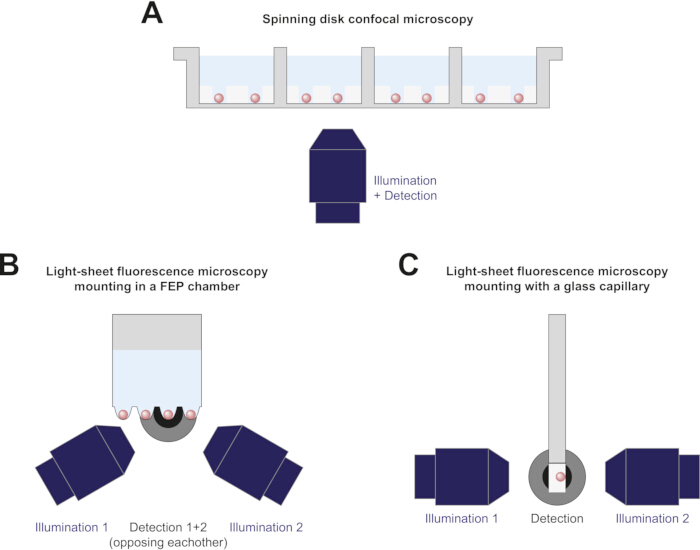
איור 4: דיאגרמות סכמטיות של מערכות הדמיה המתאימות לאסטרטגיות ההרכבה המתוארות. (א) ספרואידים המותקנים בבארות אגרוז ומצולמים במיקרוסקופ קונפוקלי של דיסק מסתובב הפוך. (B) ספרואידים המותקנים בתא FEP ומדומים באמצעות מיקרוסקופ פלואורסצנציה מסוג יריעת אור המתאים להדמיה מרובת בארות6. למען הבהירות, המטרה השנייה לגילוי, הממוקמת מול מטרה 1, אינה מוצגת. (C) ספרואיד המוטמע באגרוז ומותקן בקפילריה זכוכית למיקרוסקופ פלואורסצנציה של יריעת אור באמצעות מיקרוסקופ עם תצורה חלופית לעומת (B). אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
3. מיקרוסקופיה קונפוקלית של דיסק מסתובב
- תדמיין את הדגימות על מיקרוסקופ הפוך המצויד ביחידת דיסק מסתובבת. כוון את טמפרטורת תא המיקרוסקופ ל-18-21 מעלות צלזיוס. אם אי אפשר לקרר את המיקרוסקופ, קרר את החדר במקום.
- בחרו מטרה עם שדה ראייה שמכסה את כל המדגם. לדגימות המותקנות בבארות אגרוז, שדה הראייה צריך לכסות את כל הבאר.
הערה: עדיף להשתמש במטרה יבשה, במיוחד עבור מערכי נתונים של טיים-לאפס עם מספר דגמים. - הכניסו את מחזיק הדגימה לשלב המיקרוסקופ. הפעל אור משודר וקבע את זמן החשיפה.
- בחר אורך גל לייזר, עוצמת לייזר וזמן חשיפה עבור הפלואורופורים הנמצאים בדגימה. בחר שילוב של עוצמת לייזר וזמן חשיפה שהוא נמוך ככל האפשר כדי להפחית את הסיכון לפוטוטוקסיות אך גבוה מספיק כדי לקבל יחס אות לרעש טוב.
הערה: דגימות חיות עשויות לזוז משמעותית במהלך ההצלמה. ככל האפשר, לבצע רכישת פלואורסצנציה ואור מועבר בו-זמנית, או פלואורסצנציה בלייזר כפול, באמצעות שתי מצלמות. אם מצולמים יותר משני ערוצים, יש לתת עדיפות לרכישת ערוצים סימולטנית שבהם חפיפה מדויקת היא החשובה ביותר. - מצא את כל הדגימות וקבע אותן כמספר מיקומי הדמיה. לכל דגימה, צור ערימת z שמתחילה במישור הקרוב ביותר למטרה ומסתיימת במישור הראשון שאינו בפוקוס. לספרואידים של הידרה מומלץ לצאת לגודל צעד של 2 מיקרון.
הערה: יצירת ערימת z אינה תמיד הכרחית. לדוגמה, כאשר בוחנים את ההתנהגות התנודתית של ספרואידים מתחדשים של הידרה , מישור יחיד המתמקד במישור המשווה של הדגימות מספיק. כאשר דגימות הידרה שקעו כראוי לתחתית באר האגרוז, ונבחרה מטרה מתאימה, המטוס צריך להיות בטווח העבודה מהמטרה. - הגדר את פרמטרי הטיימלפס. זמן של 60-70 שעות עם הדמיה כל 10 דקות מתאים לצילום ההתחדשות המלאה של ספרואידים של הידרה . תתחיל להדמיות.
4. מיקרוסקופיית פלואורסצנציה בצורת יריעת אור
- דמיין את הדגימות על מיקרוסקופ אור עם מטרות גילוי ממוקמות אופקית.
- לפני שמתחילים, יישר את לוח האור שנוצר על ידי מטרות האור. כוון את טמפרטורת תא המיקרוסקופ ל-18-21 מעלות צלזיוס. אם אי אפשר לקרר את המיקרוסקופ, קרר את החדר במקום.
- בחר מטרה לזיהוי שיכולה להתאים לדגימה המלאה בשדה הראייה שלה. כאשר לדגימות יש מקום לזוז, בחר מטרה לזיהוי שמתאימה לכך.
- הנח את מחזיק הדגימה במיקרוסקופ. אם הדגימות מותקנות בקפילרי זכוכית, דחוף את הבוכנה כלפי מטה עד שהדגימות יוצאות מהזכוכית כדי לצלם רק דרך האגרוז (איור 3C).
- הגדר את הגדרות המיקרוסקופ לאור מועבר, פלואורסצנציה, מיקומים מרובים וזמן-לפס כפי שמתואר בסעיף 3 (מיקרוסקופיה קונפוקלית של דיסק מסתובב).
- אם המיקרוסקופ אינו מצויד במספר מטרות גילוי, הקם גילוי רב-תצוגה כדי לזהות את הדגימה מזוויות שונות. כאשר ניתן לזהות יותר ממחצית מהדגימה בתוך מחסנית z אחת, מספיקות שתי נקודות מבט המופרדות בזווית של 180°. חלופה נוספת היא להשתמש בשלוש עד חמש תצפיות.
- יש להקים ערימות z עם גודל צעד מתאים, ולספרואידים של הידרה מומלץ לגודל צעד של 2 מיקרון. ערימת ה-z אמורה לכסות את כל הדגימה. בעת הדמיה של דגימות הנעות בחופשיות בבארות FEP, צור ערימת z שמכסה את כל הבאר. תתחיל להדמיות.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
הצלחנו להפיק מאגרי נתונים לטווח ארוך לחידוש ספרואידים של הידרה באמצעות מיקרוסקופ קונפוקלי דיסק מסתובב (SDCM) ומיקרוסקופיית פלואורסצנציה של יריעת אור (LSFM). התחדשות התרחשה כרגיל בשתי מערכות ההדמיה: הספרואידים שברו את הסימטריה, התארכו, ופיתחו זרועות ורגל בתוך 3 ימים (איור 5A, איור 6A, סרטון משלים 1 וסרטון משלים 2). לאחר הדמיה ממושכת, בעלי החיים המתחדשים הפכו ניידים מדי והחלו לצאת מהפוקוס או אפילו מחוץ לש...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
גם SDCM וגם LSFM מתאימים היטב ליצירת מאגרי נתונים לטווח ארוך של ספרואידים מתחדשים של הידרה. העקרונות האופטיים שעליהם מבוססת כל טכניקה הם שונים, ולכן הם מציעים יתרונות ומגבלות ייחודיים (טבלה 2). SDCM מועדף כאשר אין צורך בתצוגה מלאה וברזולוציה גבוהה של הדגימה. ניתן להדגים מספר דגימות בניסוי אחד, מה שהופך אותו לשימושי במיוחד לבדיקת מצבים שונים כגון טיפולים בתרופות. בנוסף, מערכי הנתונים של SDCM פשוטים לעיבוד וניתוח, מה שהופך אותה לטכניקה מהירה ונגישה יותר מבין השתיי...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים שאין להם ניגודי עניינים.
תודות
אנו רוצים להודות ללור פלנטארד מהמתקן להדמיה מתקדמת ומיקרוסקופיה ב-FMI על תרומתה החשובה. עבודה זו נתמכה על ידי קרן המחקר נוברטיס.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 20×/0.8 Plan-Apochromat objective | Zeiss | 440640-9903-000 | למיקרוסקופיית ספין-דיסק קונפוקלית |
| 20x/1.0 W Plan-Apochromat water dipping objective | Zeiss | 421452-9700-000 | משמש כאובייקטיב גילוי ב-Zeiss Lightsheet 7 |
| מחזיק מודפס ב-3D להתקנת תא FEP | התאמה אישית | ||
| לוח תמונה תחתית זכוכית 4 בארות (#1.5H) | Ibidi | 80427 | |
| אגרוז | Carl Roth | 3810.4 | |
| תבנית אלומיניום לתא FEP | התאמה אישית | ||
| סידן כלורי | Sigma-Aldrich | C4901 | |
| אוויר משומר | Durable | POWERCLEAN STANDARD 400 | |
| צלחת תרבית תאים (6 ס"מ) | Thermo Fisher Scientific | 150288 | |
| D-(+)-גלוקוז | Sigma-Aldrich | G8769 | |
| רדיד FEP (עובי 127 מיקרומטר) | Adtech Polymer Engineering | ||
| FluoSpheres מוכפלי קרבוקסילט (0.2 מיקרומטר, אדום כהה) | Thermo Fisher Scientific | F8807 | |
| ניפוף זכוכית | Brand | 701904 | |
| צינורית פסטר זכוכית (150 מ"מ) | VWR | 612-1701 | |
| Hydra vulgaris | |||
| תוכנת הדמיה | Visitron | VisiView | למיקרוסקופיית ספין-דיסק קונפוקלית |
| מיקרוסקופ אור מהופך | Zeiss | Axio observer 7 | למיקרוסקופיית ספין-דיסק קונפוקלית |
| מיקרוסקופ סדין אור | Leica | Viventis Deep LS2 | |
| מיקרוסקופ סדין אור | Zeiss | Lightsheet 7 | |
| אגרוז נקודת-התכה נמוכה | Thermo Fisher Scientific | R0801 | |
| מגנזיום כלורי | Sigma-Aldrich | M8266 | |
| מגנזיום סולפט | Sigma-Aldrich | M2643 | |
| מיקרו-סקלפל | pfm medical | 200300745 | |
| בלון פיפטה | |||
| פיפטור מעבר מוט בוכנה | Brand | 701932 | |
| אשלגן כלורי | Sigma-Aldrich | P9333 | |
| מבער בנסן בטיחותי | INTEGRA Biosciences | FIREBOY plus | |
| מצלמות sCMOS | Photometrics | Prime 95B | למיקרוסקופיית ספין-דיסק קונפוקלית |
| נתרן ביקרבונט | Fluka Analytical, Sigma-Aldrich | 71630 | |
| נתרן ציטראט די-הידרט | Sigma-Aldrich | W302600 | |
| נתרן פירובט | Sigma-Aldrich | P2256 | |
| יחידת סריקה קונפוקלית ספין-דיסק (חור 50 מיקרומטר) | Yokogawa | CSU-W1 | למיקרוסקופיית ספין-דיסק קונפוקלית |
| סטרואוסקופ | Leica | M80 | |
| TES | Sigma-Aldrich | T1375 | |
| מכונת תרמופורמינג | Yuyao Jintai Machine Factory | Jintai JT-18 | |
| כלי תרבית רקמות (10 ס"מ) | VWR | 734-2321 | |
| חיץ Tris-HCl | Roche Diagnostics | 10812846001 |
מקורות
- Bode, P. M., Bode, H. R. Formation of pattern in regenerating tissue pieces of hydra attenuata: I. Head-body proportion regulation. Dev Biol. 78 (2), 484-496 (1980).
- Fütterer, C., Colombo, C., Jülicher, F., Ott, A. Morphogenetic oscillations during symmetry breaking of regenerating hydra vulgaris cells. Europhys Lett. 64 (1), 137(2003).
- Weevers, S. L., et al. Mechanochemical patterning localizes the organizer of a luminal epithelium. Sci Adv. 11 (26), eadu2286(2025).
- Oreopoulos, J., Berman, R., Browne, M. Chapter 9 - Spinning-disk confocal microscopy: present technology and future trends. Meth Cell Biol. 123, 153-175 (2014).
- Stelzer, E. H. K., et al. Light sheet fluorescence microscopy. Nat Rev Meth Primers. 1 (1), 73(2021).
- Moos, F., et al. Open-top multisample dual-view light-sheet microscope for live imaging of large multicellular systems. Nat Meth. 21 (5), 798-803 (2024).
- Soriano, J., Colombo, C., Ott, A. Hydra molecular network reaches criticality at the symmetry-breaking axis-defining moment. Phys Rev Lett. 97 (25), 258102(2006).
- Livshits, A., Shani-Zerbib, L., Maroudas-Sacks, Y., Braun, E., Keren, K. Structural inheritance of the actin cytoskeletal organization determines the body axis in regenerating hydra. Cell Rep. 18 (6), 1410-1421 (2017).
- Hanson, A., et al. Automatic monitoring of neural activity with single-cell resolution in behaving hydra. Sc Rep. 14 (1), 5083(2024).
- Escobar, A., et al. Terminal differentiation precedes functional circuit integration in the peduncle neurons in regenerating hydra vulgaris. Neural Dev. 19 (1), 18(2024).
- Ferenc, J., Tsiairis, C. D. Studying Mechanical Oscillations During Whole-Body Regeneration in Hydra. Whole-Body Regenerat. 2450, 619-633 (2022).
- Bossert, P., Galliot, B. How to use hydra as a model system to teach biology in the classroom. Int J Dev Biol. 56 (6-8), 637-652 (2012).
- Jemielita, M., Taormina, M. J., Delaurier, A., Kimmel, C. B., Parthasarathy, R. Comparing phototoxicity during the development of a zebrafish craniofacial bone using confocal and light sheet fluorescence microscopy techniques. J Biophotonics. 6 (11-12), 920-928 (2013).
- Icha, J., Weber, M., Waters, J. C., Norden, C. Phototoxicity in live fluorescence microscopy, and how to avoid it. Bioessays. 39 (8), 1700003(2017).
- Ravichandran, Y., Vogg, M., Kruse, K., Pearce, D. J. G., Roux, A. Topology changes of hydra define actin orientation defects as organizers of morphogenesis. Sci Adv. 11 (3), eadr9855(2025).
- Maroudas-Sacks, Y., Garion, L., Suganthan, S., Popović, M., Keren, K. Confinement modulates axial patterning in regenerating hydra. PRX Life. 2 (4), 043007(2024).
- Bailles, A., et al. Anisotropic stretch biases the self-organization of actin fibers in multicellular hydra aggregates. Proc Natl Acad Sci. 122 (32), e2423437122(2025).
- Luu, P., Fraser, S. E., Schneider, F. More than double the fun with two-photon excitation microscopy. Comm Biol. 7 (1), 364(2024).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
