המחקר הנוכחי מתאר תהליך ריצוף ננו-נקבוביות של פלסמידים כאשר רצף הכרומוזומים כבר ידוע או אינו מעניין. שלב העשרת DNA בפלסמיד מבטיח עומק אופטימלי של רצף הפלסמידים וממקסם את מספר הדגימות שניתן לרצף בכל תא זרימה.
מאמר שיטה
ריצוף והרכבה של פלסמידים לקריאה ארוכה באמצעות זרימות עבודה מבוססות ריצוף ננופורי
* These authors contributed equally
במאמר זה
סיכום
תקציר
המחקר הנוכחי מתאר תהליך ריצוף ננו-נקבוביות שנועד למקסם את תפוקת DNA הפלסמיד ואת דיוק הריצוף. החוקרים מכסים כל שלב בתהליך, הכולל חילוץ DNA מפלסמיד, הכנת ספרייה עם ברקוד מהיר וקשירת מתאמים, טעינת הספרייה על תא זרימה לצורך ריצוף, קריאת בסיס (בזמן אמת או בפוסט-הוק), והרכבת רצפים באמצעות Autocycler. המחברים גם מגדירים את דרישות המחשב, התלויות במידה רבה בשאלה האם קריאת בסיס מתבצעת בזמן אמת. המחברים רצפו פלסמידים שטוהרו מעשרה זנים קליניים באמצעות תהליך עבודה זה. כדי להסיר את ההבדלים בין זן תא מארח כמשתנה, המחברים גם צידדו זנים קליניים אלה עם זן מקבל משותף ורצפו את הטרנסקונוגנטים. ניסויים אלו הניבו הרכבות פלסמידים שתואמות את גדלי הפלסמיד שהוסקו מניידות הג'ל, ובשני שלישים מהמקרים גם הן תואמות הרכבות מלוטשות קצרות קריאה או בטווח של 0.05% זהות רצף זוגי. העשרת רצפי DNA של פלסמיד גם ממקסמת את יעילות ריצוף הפלסמידים, ומאפשרת ריצוף מקביל של עד 24 דגימות עם כיסוי אופטימלי. פרוטוקול זה מספיק לפלסמידים בנפח של 4 עד 174 קילוברק וסובל זיהום כרומוזומי של עד 72% מבלי לפגוע בדיוק. פרוטוקול זה אידיאלי למצבים שבהם רצף הכרומוזומים כבר ידוע או אינו מעניין, כמו לאימות רצפי פלסמידים, שיפור דיוק רצפי הפלסמידים שכבר התקבלו על ידי WGS, או ריצוף פלסמידים שנלכדו בקונוגציה. האורגניזם המשמש להמחשת עבודה זו הוא Escherichia coli, המייצג מארחים המשמשים לביטוי גנים רקומביננטיים וללכידת פלסמיד באמצעות קונוגציה.
מבוא
פלסמידים הם חלקי DNA המשכפלים את עצמם שנמצאים באופן נרחב בחיידקים. הם משתנים מאוד בגודלם, ונעים בין <800 bp ל-2.5 Mbp, והם בדרך כלל עוקבים אחרי התפלגות בימודלית, עם שיא קטן יותר המתאים לפלסמידים מולטי-העתקים ולא מצומדים ושיא גדול יותר המתאים לפלסמידים 1,2 בעלי עותק נמוך, לעיתים קונוגטיביים. הפלסמידים ממלאים תפקיד מרכזי באקולוגיה מיקרוביאלית, נושאים גנים המסייעים למארחים להסתגל לאתגרים סביבתיים או לגשת לנישות אקולוגיות חדשות. פלסמידים משמשים גם כפלטפורמות לאבולוציה מואצת, מספקים גמישות גנטית מוגברת ומתווך העברת גנים אופקית בין זנים, מינים, סוגים ואפילו משפחות 3,4. ניתוחים גנומיים ברשת ובהשוואות אישרו את תפקיד הרזסטום הסביבתי כמאגר מתמשך לגנים עמידות לאנטיביוטיקה (ARGs) רלוונטיים קלינית, ובכך מקלים על תחזוקתם והפצתו בסביבות אקולוגיות5. מעקב אחר פלסמידים והמטען שלהם של גנים עמידות לאנטיביוטיקה ולאלימות מסייע בזיהוי דרכי העברה6. לכן, זיהוי ואפיון הפלסמידים מהווים עניין רב למגוון יישומים בתחום בריאות הציבור, מיקרוביולוגיה קלינית וביוטכנולוגיה.
הכנסת טכנולוגיות ריצוף מהדור הבא (NGS), המאפשרות ריצוף בתפוקה גבוהה של תבניות DNA לא ידועות, פתחה את הדלת לאפיון גנומי של מבודדים מיקרוביאליים. ריצוף גנום מלא (WGS) מאפשר מעקב אחר הופעתם, התפשטות והעברה של פתוגנים חדשים, זנים עמידים לתרופות ווריאנטים המתחמקים מחיסונים. היא גם משמשת יותר ויותר לסיוע בזיהוי דרכי העברה במהלך התפרצויות קליניות, וייתכן שתיידע התערבויות למניעת התפרצויות עתידיות7. לבסוף, WGS מאפשר פרופילינג של ARGs, שיכול להנחות החלטות טיפוליות8, אם כי קישור ARGs לפנוטיפים איכותניים וכמותיים של עמידות לאנטיביוטיקה עדיין נמצא בתהליך9.
עם זאת, נתוני ריצוף הקריאה הקצרה (SR) שמפיקים בדרך כלל על ידי WGS בקנה מידה גדול הם בדרך כלל בטווח של 400–500 bp. גודל זה קצר יותר מגודלם של רוב היסודות הגנטיים הניידים (MGEs) ולכן אינו יכול לפתור אותם10. זיהוי סילקו של רצפי פלסמיד בנתוני WGS מסובך עוד יותר בשל כיסוי לא מלא, ובגלל רצפים משותפים בין פלסמידים ובין כרומוזומים חיידקיים לפלסמידים אחרים10. כתוצאה מכך, ההרכבות לעיתים קרובות מפורקות ואינן שלמות, מה שהופך את מיקומן התת-גנומי (כרומוזום או פלסמיד) לבלתי ניתן לייחוס10.
טכנולוגיית ריצוף לונג קריאה (LR) יוצרת הרכבות רציפות מאוד המשתרעות על פני יותר חזרות, ומקלה מאוד על ייצור אסמבלי פלסמידים שלמים. קיימים למעשה שני סוגים של טכנולוגיות לקריאה ארוכה ומולקולה בודדת זמינות:11,12. אחת מהשיטות הללו, ריצוף ננופורים, הופכת לפופולרית בגנומיקה מיקרוביאלית בזכות עלותו הנמוכה, זמני החזרה המהירים והתאמתה לסביבות מוגבלות משאבים13,14.
מכשירי ריצוף ננו-נקבוביים משתמשים בתאי זרימה המכילים מערכים של אלפי ננו-נקבוביות. ה-DNA נטען לתא הזרימה, נפתח על ידי חלבון מוטורי עם פעילות הליקאז, והוא עובר דרך הננופור שמונע על ידי דיפרנציאל זרם. כאשר נוקלאוטידים בגדיל יחיד מסוים עוברים דרך ננו-נקבוביות בודדות, הזרם מופרע ליצירת אות אופייני הנמדד על ידי חיישן אלקטרוני המחובר לכל נקבובית. אות זה מפוענח באמצעות אלגוריתמים של קריאת בסיס, והנתונים המתקבלים מורכבים ומנותחים בהמשך באמצעות כלים ביואינפורמטיים שונים.
בהשוואה לגישות של ריצוף SR, ריצוף ננו-נקבוביות נוטה להפיק איכות קריאה נמוכה יותר (ציוני Q נמוכים יותר) וליצור הכנסות/מחיקות ברצפי הומופולימר במהלך ניתוח הנתונים של אותות חשמליים (קריאת בסיס)15. נצפה גם כי מתילציה סמוכה ב-DNA טבעי עלולה לגרום לשגיאות בסיסיותשיטתיות 16. פתרון נפוץ הוא לכלול נתוני קריאה קצרה לתיקון שגיאות לאחר ההרכבה. עם זאת, תהליך זה (המכונה "ליטוש") מעלה את העלות והמורכבותב-17. הגדלת כיסוי הרצף יכולה גם לשפר את הדיוק, אך זה לא תמיד אפשרי טכנית.
בשנת 2024 הוכח כי תאי זרימה R10.4.1 של Oxford Nanopore Sequencing (ONT) וכימיה V14 מספקים הרכבות איכותיות ורציפות לחיידקי G, בעוד שניתוחים בקנה מידה עדין יותר ברמות נוקלאוטידים בודדים עדיין נהנים מנתוני ריצוף SR18. עם זאת, הפער בין דיוק ריצוף LR ל-SR הולך ומצטמצם. שיפורים רבים לאחרונה כוללים תהליך דגימת נתונים מדויק יותר במהירות ריצוף מוגברת, הכנסת קורא בסיס חדשני המותאם ל-DNA חיידקי טבעי ומתילציה, מה שהניב דיוק בסיסימוגבר 19, וכלי ניתוח מעודכנים כגון אלגוריתמים חדשים לפאז', קריאת וריאנטים וקריאת אללים כוכביים. יש לשים לב גם כי האלגוריתם האחרון של דוראדו V.0.9.0 ONT (2025) יכול לשמש לקריאת בסיס מחדש של נתוני סקוויגל גולמיים. למעשה, מחקרים מסוימים של WGS כבר מדווחים על יצירת גנומים מיקרוביאליים באמצעות ריצוף ננופורים באיכות שבה ליטוש קצר לא צפוי לשפר משמעותית את רצף הקונצנזוס20,21.
פלסמידים מכילים לעיתים קרובות את רוב גני העמידות הנרכשים, במיוחד בבידוד אנטרובקטריאקיאה22. לכן, פתרון רצפי פלסמידים מאפשר הקשר של גני AR, דבר שהוא מפתח למעקב אחר העברת AMR23,24. רצף ננופורים כבר שימש לבחינת המיקרואבולוציה של blaKPC המכיל פלסמידים25. מכשירי MinION שימשו גם לריצוף בזמן אמת של פלסמידים ולזיהוי גנים של עמידות בבידוד קליניבבתי חולים 26. עם זאת, חקירת פלסמיד עדיין אינה חלק מהנוהג השגרתי לבקרת זיהומים.
למרות השיפור המשמעותי בריצוף ה-LR לעומת ריצוף SR ביכולת להציל פלסמידים מרצף גנומי27, קיימות בעיות מסוימות. מרכיבי קריאה ארוכה כמו Flye28, Canu29 ו-Raven30 מייצרים הרכבות כרומוזומליות באיכות גבוהה אך מתקשים להרכיב רצפי פלסמידים. זה נובע בחלקו מחוסר עומק כיסוי משום ש-DNA של פלסמיד מיוצג פחות בנתוני ריצוף WGS31. יש לשים לב שבגלל המבנה המודולרי שלהם, שפע המבנים המשניים ונוכחות תכופה של חזרות, ההרכבה האיכותית של רצף DNA פלסמידי דורשת כיסוי גבוה יותר מאשר DNA כרומוזומי (עומק קריאה 50x32).
העשרת דגימות ה-DNA ברצפי פלסמיד היא גישה יעילה להגדלת עומק הכיסוי, אך בידוד או העשרה של DNA פלסמיד לפני ריצוף DNA יקר או מייגע מדי ליישומים אבחנתיים קליניים ועלולים לגרום להטיה על ידי העשרת רצפי DNA נבחרים. בשנת 2017, DNA מועשר בפלסמידים שימש לניסיון הרכבה מלאה של DNA פלסמיד בדגימות קליניות לצורך זיהוי ARGs24. שמונה מבודדים משישה מיני אנטרובקטריים שונים רוצפו כדי למקסם את המגוון המבני של האוכלוסייה והפלסמידים. לאחר ניסויים במספר אסמבלים, הוכח ש-Canu/Canu+Pilon ביצעו בבירור ביצועים טובים יותר מאחרים; קבוצת מחקר זו ניסתה גם שיטת מטא-אסמבלי שהשיגה רזולוציה של מבני פלסמידים נוספים, מה שהוביל להרכבה מלאה של 78% מכלל הפלסמידים הידועים בדגימות הרצף. עם זאת, נוכחות של מבנים עם חזרה גדולה ו(במידה פחותה) בעיות בהפקת DNA עדיין יצרו בעיות משמעותיות בזיהוי כל הרכבי פלסמיד חד-קונטיג.
לאחרונה, דגימה אדפטיבית כגישה משלימה להעשרת רצפי פלזמידים בעלי שפע נמוך נבדקה על ידי דחיית רצפי כרומוזומים בדגימות בידוד חיידקים, אם כי שיטה זו דורשת רצפי ייחוס ידועים33.
כאן, המחברים מתארים פרוטוקולים לריצוף ONT המותאמים לדגימות המועשרות ב-DNA פלסמיד. בשילוב ייצוג מוגבר של DNA פלסמיד עם פרוטוקולי הכנת ספרייה עדכניים, טכנולוגיית תאי זרימה וכלי הרכבת רצפים, זרימת העבודה יצרה הרכבות שהתאימו לגדלים שהוסקו מניידות הג'ל, ובשני שלישים מהמקרים, או שהתאימו לליטוש ריצוף SR או היו בטווח של 0.05% זהות רצף זוגי. העשרת רצפי DNA של פלסמיד גם ממקסמת את יעילות ריצוף הפלסמידים, ומאפשרת ריצוף מקביל של עד 24 דגימות עם כיסוי אופטימלי. הפרוטוקולים אינם מיועדים להחליף את גישות WGS הננופוריות הסטנדרטיות, אלא למקסם את הדיוק והיעילות של ריצוף הפלסמידים במצבים שבהם רצף הכרומוזומים כבר ידוע או אינו מעניין.
תהליך העבודה כולל חילוץ DNA בפלסמיד, הכנת ספרייה באמצעות ברקודינג, קישור מתאם לחלבון ממוטורי, בדיקת תא הזרימה, טעינת הספרייה על תא זרימה לצורך ריצוף, ניתוח נתונים של אותות חשמליים (בזמן אמת או לאחר מכן), הרכבת רצפים באמצעות Autocycler34, וניתוחים שונים במורד הזרם (איור 1).
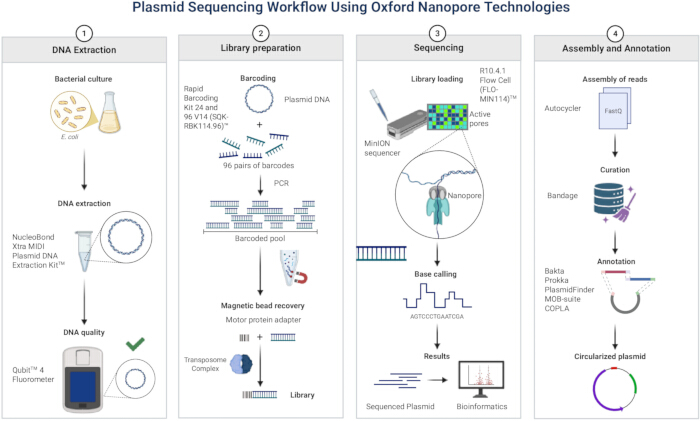
איור 1: תהליך ריצוף פלסמידים באמצעות Oxford Nanopore Technologies. שלב 1: חילוץ DNA; שלב 2: הכנת ספרייה; שלב 3: ריצוף; שלב 4: הרכבה והערות. נוצר ב-BioRender. קורטס, ג. (2026) https://BioRender.com/u3b15st. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
פרוטוקול
1. חילוץ DNA מפלסמיד
הערה: פרוטוקול זה שימש להפקת DNA פלסמיד מזן קליני של Escherichia coli ומהטרנסקונגנטים המתאימים לו באמצעות ערכת חילוץ DNA פלסמידמסחרית 35. פרוטוקולים מפורטים להטיה ניתן למצואב-36. הפרוטוקול מתאים הן לפלסמידים בעלי עותק גבוה והן לפלסמידים בעלי עותק נמוך, הנעים בין ~3 קילו-בייט ועד ~200 קילובייט. פלסמידים גדולים דורשים תשומת לב מיוחדת כי יש להם בדרך כלל מספר עותקים נמוך (רק 1–2 עותקים לתא), מה שמגביל את תפוקת ה-DNA. כדי לפצות על כך, הפרוטוקול ממליץ להגדיל את מסת התא ואת נפחי בופרי הליזה והנטרול כדי להבטיח מספיק DNA פלסמיד לקשירת עמודות. פלסמידים עד 200 קילובייט עדיין ניתנים לשחזור באמצעות פרוטוקול זה; עם זאת, היישום שלו על מגה-פלסמידים (>200 קילובייט) מוגבל.
- חילוץ פלסמיד
- יום 1: דגימות רצף על לוחות אגר Luria–Bertani (LB) שהושלמו עם האנטיביוטיקה המתאימה לבחירת סמן העמידות הרלוונטי בפלסמיד, ודגירה בטמפרטורה של 37°C למשך 24 שעות.
הערה: הוסף קרבניצילין (או אנטיביוטיקה מתאימה) ל-LB בריכוז סופי של 100 מיקרוגרם/מ"ל על ידי הוספת 1 מיקרוליטר של תמיסת מלאי של 100 מ"ג/מ"ל לכל מ"ל של תווך. - יום 2: חיסון 3–5 מ"ל LB במדיום האנטיביוטי המתאים עם מושבה מבודדת אחת מהיום הראשון. דגרו עם ניעור בטמפרטורה של 37 מעלות צלזיוס למשך ~8 שעות, או עד שהתרבית מגיעה ל-OD₆₀₀ של 1–2.
הערה: מדידת OD600: ריקנו את הספקטרופוטומטר עם מדיום LB טרי המכיל את האנטיביוטיקה המתאימה, ואז העבירו 1 מ"ל תרבית לקובטה נקייה ומדדו את ה-OD ב-600 ננומטר. אם הקריאה חורגת מהטווח הליניארי, מדלל את הדגימה ומדוד מחדש. - החרינו 400 מ"ל LB בתוספת האנטיביוטיקה המתאימה עם 400 מיקרוליטר של תרבית התחלה ביום 2. דגרו עם ניעור ב-37 מעלות צלזיוס למשך 8–12 שעות, או עד שה-OD600 מגיע ל-1–2 (כפי שתואר קודם).
הערה: הגדילו את נפח התרבית מעבר ל-400 מ"ל אם OD600 לא מגיע ל-1–2 תוך 12 שעות. כדי להפחית את הסיכון לאובדן או סידור מחדש של הפלסמיד, יש להגביל ככל האפשר את המעבר בתרבית ולשמור על בחירת אנטיביוטיקה לאורך כל שלבי הצמיחה. הגדילו את נפח התרבית רק כאשר רוצים תפוקת DNA גבוהה יותר. - יום 3: העבר את התרבית לבקבוקי צנטריפוגה המתאימים לנפח התרבית. צנטריפוגה בעוצמה 4200 x g למשך 10 דקות, ואז מחזירים את הכדור להשעה באמצעות נפחי התגובה שהומלצו על ידי היצרן בהתאם לנוסחה הבאה:
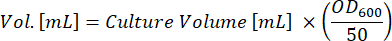
הערה: דוגמה: עבור 400 מ"ל של תרבית חיידקים עם העתק נמוך (OD600 = 2) שיש לעבור ליזה, נפחי הבופר המתאימים RES, LYS ו-NEU הם 16 מ"ל כל אחד.
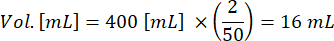
הערה: אם נפחי התגובות להשעיה, ליזיס או נטרול אינם מותאמים כראוי לביומסה הכוללת של התרבית (OD600 × Volume, או ODV), הליזה עלולה להיות לא שלמה, הנטרול אינו יעיל, ויצירת המשקעים מופרזת. דבר זה עלול להוביל לתפוקת פלסמידים נמוכה יותר, לירידה בטוהר ולסתימה פוטנציאלית של עמודות הטיהור. הגדלת נפחי הבופר באופן פרופורציונלי, באמצעות נוסחת היצרן (שלב 1.1.4), מבטיחה פירוק יעיל, ניטרול מלא והשבת DNA פלסמיד איכותי באופן עקבי. - בצע ניתוק תאים, סינון רטיבות באמצעות הבופר המתאים, ונטרול לפי הוראות הערכה.
הערה: ערמו שני מסננים אם נפח המשקעים גדול, תוך כוונון הבופר באופן פרופורציונלי. בצע שלבי צנטריפוגה נוספים אם הסופרנטנט נשאר אטום. לאחר הנטרול, נפח המשקעים הגבוה עשוי לדרוש שלבי צנטריפוגה נוספים. זה נכון ברוב הדגימות הקליניות של E. coli, ייתכן כי הן נוטות ליצור ביופילם בתרבית37, הכוללת הפרשת מטריצה עבה38. משקעים מופרזים בליזאט עלולים לסתום את העמודה, להאריך את זמן הניקוז ואף לזהם את הדגימה בחלבונים. אם הסופרנטנט נקי, ייתכן שהשלבים הנוספים הללו אינם נחוצים. - צנטריפוגה את הליזאט ב-4200 x g למשך 30 דקות. העבר את הסופרנטנט לצינור וצנטריפוגה חדשים שוב למשך 30 דקות. אם הסופרנטנט נשאר אטום לאחר הסיבובים הללו (איור 2), בצע צנטריפוגה נוספת בעוצמה של 4200 x g.
הערה: העברת הליזאט לצינור תרבית בנפח 50 מ"ל במהלך הצנטריפוגציה עשויה להקל על הסרת הסופרנטנט, שכן משקעים לעיתים לא מצליחים להתפזר כראוי ולהיתפס בקרבת ראש הצינור. עקב נפחים גדולים שעובדים, עמודה אחת עלולה להיות רוויה ולא מסוגלת להכיל דגימות נוספות. כדי להאיץ את מהירות הסינון או למקסם את תפוקת ה-DNA, ניתן לפצל את הליזאט בין שתי עמודות. - בצע שלבי EQU, WASH ו-ELU לפי הוראות הערכה.
- להשקיע DNA באמצעות איזופרופנול.
הערה: דגרו בטמפרטורה של -20°C למשך ~10 דקות אם הכדור אינו נראה. עם זאת, בדרך כלל עדיף להסיר בזהירות את הסופרנאנט, תוך אמון שהכדור נשאר דבוק לדפנות הצינור, גם אם אינו גלוי. - שטוף DNA באתנול כפי שהונחה. בצע שטיפה נוספת אם משקעי החלבון נשארים.
- DNA יבש בטמפרטורת החדר (~20 מעלות צלזיוס) למשך 15–30 דקות.
- להחזיר את ה-DNA ל-100 מיקרוליטר מים ללא נוקלאז; נפח קטן זה מסייע למקסם ריכוז להכנת ספריית ננופור.
הערה: זהו נקודת עצירה נוחה. ניתן לאחסן DNA של פלסמיד במשך מספר חודשים בטמפרטורה של –20 מעלות צלזיוס. ערכת החילוץ המשמשת בפרוטוקול זה מהונדסת למזער זיהום מ-DNA כרומוזומי (גנומי) באמצעות כימיה מיטבית של בופר, ליזיס עדין ושלבים של הבהרה של ליזאט, אם כי לא ניתן לשלול זיהום משמעותי ב-DNA כרומוזומלי, והמחברים מצאו אותו בהכנות (ראו תוצאות).
- יום 1: דגימות רצף על לוחות אגר Luria–Bertani (LB) שהושלמו עם האנטיביוטיקה המתאימה לבחירת סמן העמידות הרלוונטי בפלסמיד, ודגירה בטמפרטורה של 37°C למשך 24 שעות.
- תפוקת DNA ובקרת איכות
כימות DNA והערכה את איכותו באמצעות צבעים פלואורסצנטיים, המציעים ספציפיות ורגישות גבוהה יותר לריכוזי DNA נמוכים בהשוואה לשיטות ספיגת UV. בפרוטוקול זה, משתמשים במכשיר פלואורומטר כדי לכמת בדיוק ונוח דגימות DNA, RNA או חלבון39.- תהליך עבודה בפלואורומטר
- הביאו דגימות DNA לטמפרטורת החדר. הכינו צינורות לסטנדרטים ודגימות.
הערה: חשב את נפחי הצבע והבופר המתאימים לכלול בתמיסה הפועלת בהתבסס על מספר הדגימות. לכל תקן ודגימה, יש להכין 200 מיקרוליטר של תמיסת עבודה על ידי דילול הצבע בבופר ביחס של 1:200. למכשיר יש מחשבון ריאגנט מובנה שניתן להשתמש בו גם לחישובים אלו. - הכינו את צינורות הבדיקה לפי טבלה 1.
- יש לסחרר כל צינור לכמה שניות לפני הדגירה של 2 דקות בטמפרטורת החדר.
- כייל את הפלואורומטר לפי התקנים. הכנס צינורות דגימות והקלט קריאות. להוראות מפורטות, עיינו במדריך הפלואורומטר39.
הערה: עבור תכשירים טיפוסיים לפלסמיד מידי, תפוקת ה-DNA צפויה לנוע בין ~50 ל-150 מיקרוגרם לכל תרבית של 100–400 מ"ל, בהתאם לגודל הפלסמיד, מספר העתק ותנאי הצמיחה. אורכי קריאת ננו-נקבוביות טיפוסי נעים בין ~2 קילובארט ל-20 קילובייט, כאשר קריאות חציוניות לעיתים קרובות סביב 5–10 קילובייט בפלסמידים סטנדרטיים. ערכות מבוססות קשירות יכולות לייצר קריאות ארוכות יותר (>20 קילו-בייט חציון) לפלסמידים גדולים יותר, אך ערכת המהירות מספקת הכנה מהירה יותר במחיר של קריאות מעט קצרות יותר.
- הביאו דגימות DNA לטמפרטורת החדר. הכינו צינורות לסטנדרטים ודגימות.
- תהליך עבודה בפלואורומטר
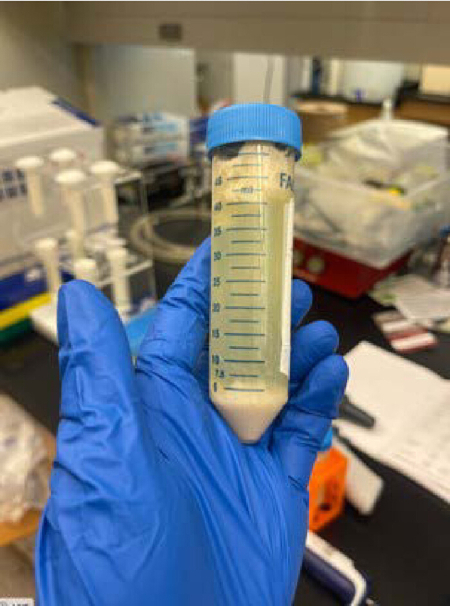
איור 2: סופרנטנט ליזאט עכור לאחר שלב צנטריפוגציה אחד. יש צורך בצנטריפוגציה סדרתית עד שהסופרנטנט מתרוקן כדי למנוע סתימה של עמודת הסינון. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
| צינורות בדיקה סטנדרטיים | מבחנים לדוגמה של משתמשים | |
| תמיסה עובדת (צבע ובופר, 1:200) | 190 מיקרו ליטר | 180–199 מיקרוליטר |
| סטנדרט (מהערכה) | 10 מיקרוליטר | – |
| דוגמת משתמש | – | 1–20 מיקרוליטר |
| נפח כולל בכל צינור בדיקה | 200 מיקרוליטר | 200 מיקרוליטר |
טבלה 1: נפחי וכמות המגיב עבור פלואורומטר. הסכומים מוצגים עבור דגימה אחת; ניתן להכין מאגר בהתבסס על מספר הדגימות שיש לנתח.
2. שיטה 2: הכנה לספרייה
הערה: שיקולים. הכנת הספרייה לריצוף הפלסמידים שהופקו בוצעה בהתאם להוראות שסופקו עם ערכת הברקודינג40. פרוטוקול זה משתמש בערכה המשתמשת בגישה מבוססת טרנספוזזה לפרגמנט וברקוד DNA בו-זמנית, ומספקת זרימת עבודה מהירה ויעילה שמקצרת את זמן ההתעסקות ומפשטת את הכנת הספרייה.
- הכנת DNA
- יום 1: תכנן מחזור תרמי: 30 מעלות צלזיוס ל-2 דקות, ואז 80 מעלות ל-2 דקות.
- הפשרה של רכיבי ערכה בטמפרטורת החדר, סיבוב למטה, וערבוב לפי טבלה 2.
הערה: אם משתמשים בצנטריפוגה, סובבו במהירות איטית שלא עולה על 330 x g. - הכנת DNA במים נטולי נוקליאז: העבר DNA של 200 ng לצינורות PCR בנפח 0.2 מ"ל והוספת נפח מתאים של מים נטולי נוקלאז לכל דגימה כדי להגיע לנפח הסופי ל-10 מיקרוליטר. ערבב בעדינות 10–15 פעמים על ידי פיפט. סובב לזמן קצר במיקרופוג או צנטריפוגה ב-330 x g כדי להקל על פיפטינג בשלבים הבאים.
- הכינו תערובות בצינורות PCR כפי שמפורט בטבלה 3.
- ערבב על ידי פיפטינג, ואז סובב למטה לרגע.
- דגרו צינורות PCR באמצעות תוכנית המחזור התרמי משלב 1. הנח צינורות על קרח כדי להתקרר.
- הסתובב למטה לרגע.
- קישור ברקוד מקורי
- דגימות ברקודיות בריכה בצינור אפנדורף נקי בנפח 1.5 מ"ל. ודא שהנפח הכולל לא יעלה על 1000 מיקרוליטר.
- החזירו את החרוזים על ידי מערבולת (Vortexing). הוסיפו נפח שווה של חרוזים לדגימות הברקודיות המאגדות וערבבו על ידי הקפה.
- דגרו צינורות במשך 10 דקות בטמפרטורת החדר במיקסר Hula.
- הכינו 2 מ"ל של 80% אתנול במים נטולי נוקלאז.
- סובבו את הדגימה והכדור על ידי החזקת הצינור מול מגנט. להשאיר את הצינור על המגנט, פיפט מהסופרנטנט כפסולת.
הערה: כל מגנט בעל חוזק וגודל מתאימים, כולל מגנטים ניאודימיום, יכול לשמש כחלופה יעילה לשימוש במתקן מגנטים יקר. מגנטים עם כוח החזקה של כ-5–12 פאונד וקוטר של 0.3–1 אינץ' מתאימים בדרך כלל לצינורות סטנדרטיים בנפח 0.2–1.5 מ"ל, ומאפשרים הסרה נקייה של חומר על-טבעי במהלך שלבי ניקוי מבוססי חרוזים. - שטוף חרוזים עם 1 מ״ל 80% אתנול כשאתה על המגנט. הסר אתנול. שטיפה חוזרת.
הערה: שינוי מיקום הצינור ביחס למגנט עשוי לשפר את קלות הסרת האתנול. השתמש בסיבוב נוסף במהירות נמוכה כדי להבטיח גלגול חרוזים מלא אם הכדור מופרע בטעות. - סובב לרגע למטה והחזר את הצינור למגנט. הוציא כל שאריות אתנול. ייבשו למשך 30 שניות, אך אל תייבשו את הכדור עד כדי סדוק.
- הסר את המגנט ותשהה מחדש את החרוזים בבופר שחרור. ראו טבלה 4 לנפחי EB המתאימים לשימוש בהתאם למספר הברקודים בשימוש.
- דגרו את הצינור למשך 10 דקות בטמפרטורת החדר.
- החזר את הצינור למגנט עד שהאלואט יהיה נקי.
- כימות את ריכוז ה-DNA באמצעות 1 מיקרוליטר של הדגימה שהוחלפה על הפלואורומטר כדי להבטיח שההכנה לספרייה בוצעה בהצלחה ולמנוע בזבוז תא זרימה על ספרייה כושלת.
- קישור מתאם
- העבר 11 מיקרוליטר מספריית ה-DNA לצינור ותווית חדשים.
הערה: יש לאחסן DNA נוסף בטמפרטורה של -20°C לריצות ריצוף עתידיות במידת הצורך. - מדלל את המתאם המהיר המופשר בצינור חדש לפי טבלה 5 ומעלה ומטה את הפיפטה לערבוב.
- הוסף 1 מיקרוליטר RA מדולל לספריית ה-DNA של 11 מיקרוליטר.
- הפך את הצינור לערבוב, סובב לרגע למטה כדי לוודא שהנפח המלא מצטבר בתחתית הצינור.
- חמור חמש דקות על הספסל.
- העבר 11 מיקרוליטר מספריית ה-DNA לצינור ותווית חדשים.
| ריאגנט | הפשרה בטמפרטורת החדר | סובב למטה | ערבב על ידי פיפטינג |
| ברקודים מהירים | לא קפוא | ✓ | ✓ |
| מתאם מהיר | לא קפוא | ✓ | ✓ |
| חרוזי AMPure XP | ✓ | ✓ | ערבב על ידי פיפטינג או וורטקס מיד לפני השימוש |
| בופר הלושן | ✓ | ✓ | ✓ |
| מאגר מתאם | ✓ | ✓ | ערבב באמצעות מערבולת |
טבלה 2: נפחי חומרים וכמויות להכנת ספריית ננופורים. הפעולות שיש לבצע עם כל מגיב מסומנות (✓).
| ריאגנט | נפח/דוגמה |
| 10 מיקרוליטר DNA תבנית (200 ng מהשלב הקודם) | 10 מיקרוליטר |
| ברקודים מהירים בגודל 1.5 מיקרוליטר, אחד לכל דגימה | 1.5 מיקרוליטר |
| נפח כולל | 11.5 מיקרוליטר |
טבלה 3: ריאגנטים ונפחים לברקודינג מהיר. נפחים מוצגים לכל דגימת DNA; ניתן להכין תערובת מאוגדת, ולהוסיף את ה-DNA בנפרד.
| ברקודים 1-24 | 48 ברקודים | 72 ברקודים | 96 ברקודים | |
| נפח בופר ההשראה | 15 מיקרוליטר | 30 מיקרוליטר | 45 מיקרו ליטר | 60 מיקרוליטר |
טבלה 4: נפחי בופר ההשקה המשמשים לכל 24 ברקודים. הנפחים מסומנים לפי מספר הברקודים.
| ריאגנט | כרך |
| מתאם מהיר (RA) | 1.5 מיקרוליטר |
| מאגר מתאם (ADB) | 3.5 מיקרוליטר |
| נפח כולל | 5μL |
טבלה 5: חומרים וכמויות למתאם. ניתן לכוונן נפחים בהתאם למספר הדגימות.
3. ריצת תאי זרימה
הערה: בחרו תא זרימה עם פלט סטנדרטי בעת ריצוף מספר קטן של פלסמידים עם דרישות כיסוי בינוניות. Nanopore ממליץ לבצע בדיקת תאי זרימה כדי לקבוע את ספירת הנקבוביות הפעילה; תאי הזרימה של מכשירי ננופור צריכים להכיל לפחות 800 נקבוביות פעילות כפי שמוגדר בקריטריוני האחריות. תא זרימה יחיד של MinION מספק פלט מספק לריצוף דגימות DNA מרובות המועשרות ב-DNA פלסמיד (ראו פרטים נוספים על מולטי-פלקסינג בסעיף הדיון), תוך שהוא מציע עלות נמוכה יותר וגמישות רבה יותר מאשר תא זרימה של GRIDion או Promethean.
- פריימינג וטעינת תא הזרימה
הערה: תאי זרימה R10.4.1 (ששוחררו ב-2022) שימשו לפיתוח פרוטוקול זה. תאי זרימה אלו בעלי נקבוביות ארוכות יותר עם ראש קורא כפול, מה שמוביל לשיפור ריצוף ההומופולימר20,21. פרוטוקול ריצוף זה וערכת הברקוד אינם תואמים לתאי זרימה אחרים. בחרו בתא זרימה בעל תפוקה גבוהה בעת ביצוע מולטי-פלקסינג בקנה מידה גדול, שאיפה לכיסוי גבוה, או עבודה עם פלסמידים או גנומים גדולים יותר. שקלו את מספר הדגימות ואת עומק היעד כדי לאזן בין עלות, קצב העברה ואיכות הרצף.- הסרת חומרים מאחסון קר, כולל זיכרון רצף (SB), חרוזי ספרייה (LIB) או פתרון ספרייה (LIS), אלבומין סרום בקר (BSA), קשר תאי זרימה (FCT) ושטיפת תאי זרימה (FCF). הפשרה על קרח בטמפרטורת החדר. לאחר שהמגיבים הפשורים, מערבבים במהירות, סובבים ומאוחסנים על הקרח.
- הכינו את פריימר תאי הזרימה על ידי ערבוב צינור DNA טרי באמצעות החומרים המפורטים בטבלה 6. ערבב על ידי היפוך ופיפטינג.
- הרם את מכסה המכשיר והכניס את תא הזרימה. הפעילו לחץ עדין כדי להבטיח מיקום נכון.
- חשפו את פתח הפריימר על ידי דחיפה של הכיסוי הצידה.
- בדוק בועות אוויר בתוך או ליד פתח הפריימרינג. למשוך 20–30 מיקרוליטר נוזל כדי להסיר בועות.
הערה: אין להסיר יותר מ-20–30 מיקרוליטר של בופר. הנקבוביות חייבות להישאר שקועות בבופר בכל עת. נקבוביות שנחשפו לאוויר עלולות להפוך לבלתי שמישות. ודא שהבופר רציף לאורך כל הערוץ הנראה. - יש למשוך 800 מיקרוליטר תערובת פריימינג ולזרוק לפורט הפריימרינג. הימנעו מהחדרת בועות אוויר. תן למכשיר לעמוד 5 דקות.
- החזיר את הליברל על ידי פיפטינג למעלה ולמטה.
הערה: השעתי מיד לפני השימוש, כי הליברליה מתייצבת במהירות. - ערבבו את ספריית ה-DNA עם נפח חרוזי הספרייה המתאים בצינור חדש, כפי שמוצג בטבלה 7.
הערה: ערכת ה-Rapid Barcoding שבה משתמשים המחברים משתמשת בגישה מבוססת טרנספוזאז לפיצול DNA מקטעים ולחיבור ברקודים ללא בחירת גודל מכוונת, כך שאורכי הקריאה משקפים בעיקר את ה-DNA המקורי שנכנס. בניגוד לערכות מבוססות ליגציה כמו ערכות הברקודינג הטבעיות, ערכת הברקידוד המהיר אינה כוללת בופרים נפרדים קצרים או ארוכים. בעוד ש-DNA ארוך יותר עדיין יכול לייצר קריאות ארוכות, ההתפלגות משתנה יותר ובדרך כלל קצרה יותר מאשר בספריות מבוססות ליגציה שמשתמשות ב-Long Fragment Buffer להעשיר מקטעים ארוכים. היעדר מאגרים מפשט את תהליך העבודה ומפחית את זמן העבודה, אך מעניק פחות שליטה על חלוקת גודל הספרייה, מה שעלול להשפיע על איכות ההרכבה. ערכות מבוססות ליגציה, על ידי העשרה סלקטיבית של מקטעים גדולים והסרת קטעים קצרים, בדרך כלל מניבות אורך קריאה חציוני גבוה יותר והמשכיות הרכבה משופרת, במיוחד עבור הרכבות דה נובו וגנומים מורכבים. - כוון את כיסוי הפורט הדגימה כדי לחשוף את היציאה. טען 200 מיקרוליטר תערובת פריימינג לפורט הפריימינג של תא הזרימה.
- ערבבו בעדינות את ספריית ה-DNA המוכנה לפני הטעינה.
- פזר 75 מיקרוליטר מספריית ה-DNA עם חרוזים לפורט הדגימה, טיפה אחר טיפה, ומאפשר לכל טיפה לספוג לפני הוספת הבאה.
- הניחו מחדש את כיסוי יציאת הדגימה וסגרו את פתח הפריימרינג.
- הוסיפו את מגן האור לתא הזרימה על ידי יישור הקצה הקדמי של מגן האור עם הקליפ ואז הורדת השאר כדי לכסות את תא הזרימה. אל תנסה למקם את מגן האור מתחת למחסנית. מגן האור צריך לשבת סביב המכסה, ולהגן על כל החלק העליון של תא הזרימה מחשיפה לאור.
הערה: התקן את מגן האור על תא הזרימה ברגע שהספרייה נטענה לקבלת פלט רצף אופטימלי. השאירו אותו דולק בכל שלב נוסף עד שהספרייה תוסר מתא הזרימה. מגן האור אינו מחובר היטב למכשיר; טפל בזהירות כדי לא להזיז אותו. - סגור את מכסה המכשיר והתחל את ריצת הרצף.
- התחלת דרישות הריצה-חישוב של ריצוף:
מינימום: מעבד עם 8 תהליכים, 16 GB זיכרון RAM, כרטיס מסך NVIDIA 1070, כונן SSD של 500 GB
מומלץ: מעבד עם 16 תהליכים, 32 GB RAM, כרטיס מסך NVIDIA 2070, כונן SSD 1TB
הערה: ודא שגם התוכנה וגם המחשב מעודכנים ושיש להם לפחות 500 GB של אחסון פנוי כדי לאפשר קבצים חדשים. עדכוני תוכנה ותוכנות אחרות עלולים להפריע לריצת הרצף. ודא שאתה מריץ את התוכנה על מערכת הפעלה של Windows או Ubuntu.- הגדר מגבלת זמן ריצה: בהתאם לכמות הפלסמידים שמולטי-פלקס, הגדר את מגבלת הריצה. ברירת המחדל היא 48 שעות, זמן מקסימלי של 72 שעות ניתן לרוץ בזמן. להוראות מפורטות, עיין במדריך.
הערה: זמן הריצה תלוי במולטיפלקסינג ובגודל הפלסמיד ולא במספר הפלסמיד. מספר הדגימות או הפלסמידים שניתן לעבור מולטיפלקס תלוי בעומק הריצוף הרצוי ובפלט של תא הזרימה. בריצוף פלסמידים טיפוסי, ריבוי 20–24 דגימות לתא זרימת ננו-נקבוביות סטנדרטי בדרך כלל מספק כיסוי מספק לזיהוי מדויק של הרכבה וגרסאות, בהנחה שגדלי פלסמיד מתחת ל~200 קילובייט. פלסמידים גדולים יותר או דרישות כיסוי גבוהות יותר עשויות לדרוש פחות דגימות לכל תא זרימה. תאי זרימה בעלי תפוקה גבוהה יותר יכולים לתמוך ביותר דגימות (עד 96 ומעלה) בכל ריצה, מה שהופך אותם למתאימים לרצף פלסמיד בקצב גבוה או לפרויקטים הדורשים כיסוי עמוק מאוד. המשתמשים צריכים לאזן בין מספר הברקודים, גודל הפלסמיד ועומק המטרה כדי להבטיח שכל פלסמיד יקבל קריאות מספקות להרכבה מלאה. - הפעל חיתוך ברקוד אם מבצע דה-מולטי-פלקסינג במהלך ריצוף.
הערה: המוניטור קורא לפי ברקוד ועוצר את הריצה כאשר מושג כיסוי מספק לשמירה על חיי תא הזרימה. - בחר במצב קריאת בסיס מדויק במיוחד.
הערה: אל תבחר בדגימה אדפטיבית/איזון ברקוד. אפשרות זו מפחיתה משמעותית את תפוקת הקריאה ומפחיתה את הנקבוביות בקצב מהיר יותר. אם אין לך כרטיס גרפי, עדיף לדחות את הקריאה לבסיס אחרי סוף הריצה. - בחר את ערכת הברקוד המהיר המתאימה (24 או 96).
- ודא שהמכשיר מאוזן והתחל את ריצת הרצף בהגדרות ברירת מחדל (מינימום ציון Q 10)
הערה: זהו נקודת עצירה נוחה. המכשיר יכול לפעול במהלך הלילה. - קריאת בסיס לאחר הוק (למקרה שהמחשב אינו מספק קיבולת לקריאת בסיס חיה או לשיפור דיוק הקריאה, ניתוח מחדש של הנתונים הגולמיים עם כלים אנליטיים משופרים): פתח את ריצת הריצוף שהושלמה בתוכנה
הערה: השלבים הבאים חלים רק אם לא בחרת שיחת בסיס חיה. - בחר בקריאת בסיס ובחר במודל הדיוק-על (SUP).
- בחר את נתוני FAST5/POD5 הגולמיים והגדר תיקיית פלט.
- תתחיל להתקשר לבסיס.
- הגדר מגבלת זמן ריצה: בהתאם לכמות הפלסמידים שמולטי-פלקס, הגדר את מגבלת הריצה. ברירת המחדל היא 48 שעות, זמן מקסימלי של 72 שעות ניתן לרוץ בזמן. להוראות מפורטות, עיין במדריך.
| ריאגנטים | נפח לכל תא זרימה |
| שטיפת תאי זרימה (FCF) | 1,170 מיקרוליטר |
| אלבומין סרום בקר (BSA) בנפח 50 מ"ג/מ"ל | 5 מיקרוליטר |
| כבל תאי זרימה (FCT) | 30 מיקרוליטר |
| הנפח הכולל הסופי בצינור | 1,205 מיקרוליטר |
טבלה 6: מגיבים ונפחים לפריימר וטעינת תא הזרימה. נפחי המגיבים מסומנים לכל תא זרימה.
| ריאגנטים | נפח לכל תא זרימה |
| בופר רצף (SB) | 37.5 מיקרוליטר |
| חרוזי ספרייה (LIB) או פתרון ספרייה (LIS), אם משתמשים בשימוש | 25.5 מיקרוליטר |
| ספריית DNA | 12 מיקרוליטר |
| סך הכל | 75 מיקרוליטר |
טבלה 7: חומרים וכרכים לטעינת הספרייה. נפחים מוצגים עבור ספריית ה-DNA; חרוזי ספרייה (BID) צריכים להיות מעורבבים מיד לפני השימוש.
4. שיטה 4: הרכבה באמצעות אוטוסייקלר
הערה: ישנן אפשרויות רבות להרכבת קריאות לתוך קונטיגים. לכל אסמבלר יש את היתרונות וההטיות שלו. פרוטוקול זה ממליץ להשתמש ב-Autocycler, המשתמש בהרבה הרכבות שונות ומשלב אותן להרכבה אחת. זה דורש עבודה רבה יותר, וניתן להשתמש במרכיב יחיד כדי לחסוך זמן. אנא התקינו את Conda בטרמינל כדי להוריד את התוכנה המתאימה. מסמך הפקודות המשלימות מכיל קישור לקובץ סביבתי להקמת המערכת.
- הערכת איכות הריצה: בדוק את איכות הריצה מתוכנת Minknow או מדוח הריצה .html קובץ כדי לציין מדדי איכות (תפוקה, Q-score, אורך, התפלגה). באופן אופציונלי, העריך קבצי FASTQ באמצעות NanoPlot כדי לאשר התפלגות אורך הקריאה, N50, ופרופילי ציון איכות לכל ברקוד. יש להמשיך רק אם התפלגויות אורך הרצף והרצף תואמות את גודל הפלסמידים הצפוי.
- הסרת ברקודים: קבעו האם חיתוך הברקוד הופעל במהלך ריצת הרצף. אם לא הוסרו ברקודים, יש לחתוך את קבצי FASTQ באמצעות Porechop (v0.2.4) ולוודא הסרה מוצלחת של רצפי מתאם הברקוד לפני ניתוח הזרם.
- קריאות גימור: קריאות חיתוך ארוכות באמצעות Filtlong (v0.3.1), מה שמסיר כ-5–10% מהקריאות באיכות הנמוכה ביותר תוך שמירה על ~90% מהתפוקה הכוללת. יצר קובץ FASTQ מסונן להרכבה. אם הרכבות הבאות מייצרות קונטיגים כימריים, יש להגדיל את קפדנות הסינון על ידי אכיפת סף אורך קריאה מינימלי של ≥3,000 bp וליצור מחדש קריאות מסוננות.
- סאב-דגימה והרכבה של תת-קריאה: סאב-דגימה קוראת באמצעות Autocycler לפי הגדרות מומלצות ומרכיבה כל תת-קבוצה לפי Raven (v1.8.3), Flye (v2.9.6), Canu (v2.3.0), miniasm (v0.3.0), Myloasm (v0.2.0), NECAT (v0.0.1), Plassembler (v1.8.1) וכל הרכבות אחרות לבחירה. שימו לב לאורך הקונטיגים ומצב המעגליות לכל הרכבה. אסמבלים שמדווחים על מעגליות (Raven, Flye, miniasm, Myloasm ו-Plassembler) צריכים לקבל עדיפות לשחזור פלסמידים. להרכבות Canu ו-NECAT, יש לזהות קונטיגים מועמדים לפלסמיד בהתבסס על גודל פלסמיד צפוי מקונטיגים מעגליים בהרכבות קודמות.
- בדקו ואצרו הרכבות: המחישו כל קובץ גרף הרכבה (.gfa) באמצעות Bandage (v0.9.0) והערכו קונטיגים למעגליות, עקביות גודל בין המרכיבים והוכחות לחיבורים כימריים. הסר קונטיגים ליניאריים חסרי תמיכה בין מספר אסמבלים ושמר על קונטיגים מעגליים עם הערכות גודל עקביות. אם רבות מההרכבות כוללות חיבורים כימריים, חזרו לשלב 4.3 והגדלו את סף אורך הקריאה המינימלי (מומלץ ≥3,000 בסיס). במקרים שבהם פלסמידים עיקריים מעגליים אך נשארים קונטיגים קטנים וחסרי תמיכה, יש להסיר קונטיגים קטנים לפני יצירת קונצנזוס. המשך ליצירת קונצנזוס ושלבי ליטוש יכולים להתבצע באצווה לאחר אוצרות ידנית.
- יצירת קונצנזוס והרכבה סופית: לאחר אוצרות ידנית, המשיכו ביצירת קונצנזוס Autocycler באמצעות ההרכבות המאוצרות. בצע את פקודות האוטוסייקלר שנותרו כדי לייצר את רצף הפלסמידים הסופי הקונצנזוס. הוראות שורת פקודה מפורטות והגדרות פרמטרים מסופקות בחומר המשלים.
- ליטוש: לאחר שנוצרה הרכבה מלאה, לברשו את ההרכבה באמצעות קריאות ארוכות עם Medaka (v2.1.1) כדי לשפר משמעותית את דיוק הקונצנזוס.
הערה: בעוד שקליעים נוספים יכולים לעזור לדיוק קונצנזוס, הם גם עלולים לגרום לטעויות. מומלץ להשתמש בתוכנה כמו DNAapler כדי לסובב את הקונטיג החדש לפני הליטוש; ניתן למצוא פקודות בסעיף הפקודות המשלמות.
5. שיטה 5: הערות
הערה: קיימים כלים רבים יעילים להערות עבור חיידקים. התוכניות הבאות מומלצות להערות מעמיקות.
- בכטה מצוינת לניתוחים פרוטאומיים כי היא מתוחזקת כיום באופן פעיל ומשמשת כיורשת הרוחנית של פרוקה41,42.
- להקליד רפליקונים, טיפוס ניידות פלסמיד וטיפוס קונוגציה, MOB-suite אמין6. MOB-suite יכולה להסיק פילוגניה של פלסמיד באמצעות מרחק mash ויכולה לזהות אלמנטים של רצף החדרה (IS)43.
- COPLA הוא גם כלי שימושי לטקסונומיה של פלסמידים. הגישה הייחודית של קופלה, שממסווגת פלסמידים ליחידות טקסונומיות של פלסמידים, מומלצת בשטח44.
הערה: פילוגניה של פלסמיד הציבה היסטורית אתגרים משמעותיים, משום שמבנה הפלסמיד המודולרי ותדירות גבוהה של רקומבינציה מקשים על יישור רצפים. COPLA מתמודדת עם אתגרים אלה על ידי חישוב זהויות נוקלאוטידים ממוצעות (ANI).
תוצאות
זנים קליניים של E. coli
כדי להמחיש את השימוש ב-ONT לריצוף פלסמידים מזנים קליניים, המחברים רצפו 10 זנים, שהיו מתנה נדיבה מד"ר סטיבן סליפנטה מאוניברסיטת וושינגטון. זנים אלו היו חלק מאוסף של 312 מבודדים שמקורם בדם או שתן של E. coli פתוגני אקסטרנסיטינלי (ExPEC), שהושגו במהלך טיפול קליני שגרתי במרכז הרפואי של אוניברסיטת וושינגטון45.
הצמדת פלסמיד ואפיון באמצעות בדיקת ניידות ג'ל
החוקרים גם ביצעו בדיקת הצמדה באמצעות זן E. coli LMB100 כמקבל. הצ'וגציה היא תהליך שמוביל להעברת פלסמיד הנמצא בתא (התורם) לתא אחר (הנקרא המקבל)46. ההעברה דורשת מגע פיזי בין שני התאים ומזוהה בדרך כלל באמצעות סמנים המצביעים על נוכחות הפלסמיד הצמוד בתאי המקבל. דבר זה אפשר למחברים לבטל הבדלים בזן המארח כמשתנה ולהמחיש את השימוש בפרוטוקול לריצוף הפלסמידים שהושגו על ידי לכידת פלסמיד (שיטה המשמשת לפרופיל פלסמידים מנישה אקולוגית נתונה). כל בדיקות הקונוגציה הפיקו טרנסקונג'וגנטים, שאישרו את קיומו של פלסמיד קונוגטיבי בתורמים. הפרוטוקול שהמחברים פעלו בו מתואר בפרק36. הקבוצה זיהתה את הפלסמידים הנמצאים בזני התורם והמקבל והעריכה את הניידות שלהם באמצעות אלקטרופורזה ג'ל שדה פולס (PFGE). רשימה של עשרה זני תורם מייצגים מוצגת בטבלה 8, והגדלים המשוערים של הפלסמידים הנמצאים בהם מופיעים בעמודה השלישית. פלסמידים מחוץ לטווח הרזולוציה של ג'ל PFGE אינם כלולים בטבלה זו, אך החוקרים הצליחו להרכיב מספר פלסמידים קטנים יותר סביב ~4kb (לא מוצג).
| זן תורם | פלסמיד | גודל משוער של PFGE | אורך ההרכבה | עומק ממוצע | עומק אפס של bp | אחוז כיסוי | תפקידים ששונו | אחוז דיוק לפני SR |
| blood_08 _0081 | pblood_08_ 0081_1 | 170000 | 171829 | 100 | 99.941803 | 54 | 0.0314 | 99.9686 |
| blood_08 _0081 | pBlood_08_ 0081_2 | 82000 | 85576 | 46.9 | 0 | 100 | 2 | 99.9977 |
| blood_d-08 _0094 | pBlood_d-08 _0094 | 179000 | 173334 | 382.6 | 3121 | 98.19943 | 2,347 | 98.646 |
| blood_08 _1447 | pBlood_08 _1447 | 97000 | 99624 | 36.2 | 0 | 100 | 0 | 100 |
| blood_10 _0913 | pBlood_10 _0913_1 | 70000 | 71788 | 49 | 4 | 99.994428 | 188 | 99.7381 |
| blood_10 _0913 | pBlood_10 _0913_2 | 112000 | 118727 | 41.2 | 126 | 99.893874 | 276 | 99.7675 |
| blood_1 1_184 | pBlood_11 _184_1 | 150000 | 146583 | 65.1 | 287 | 99.804206 | 134 | 99.9086 |
| blood_11_184 | pBlood_11 _184_2 | 75000 | 74263 | 82.1 | 0 | 100 | 32 | 99.9569 |
| blood_2011 _0238 | pBlood_ 2011_0238 | 170000 | 167286 | 110.9 | 0 | 100 | 0 | 100 |
| upec_108 | pUPEC_108 | 130500 | 131039 | 103.9 | 0 | 100 | 0 | 100 |
| upec_134 | pUPEC_134 | 160500 | 157829 | 169 | 0 | 100 | 0 | 100 |
| upec_271 | pUPEC_271 | 145500 | 144519 | 86 | 33311 | 76.950436 | 1,557 | 98.9226 |
| upec_90 | pUPEC_90 | 70000 | 74624 | 139.8 | 0 | 100 | 6 | 99.992 |
טבלה 8: הערכות גודל פלסמיד ומדדי דיוק ריצוף עבור פאנל של 10 זנים של תורמים. הערכות גודל הפלסמיד המבוססות על PFGE או רצפי פלסמיד תורמים מורכבים של ONT מפורטים. ההשוואות הזוגיות בין הרכבות פלזמיד מלוטשות ברצף ONT בלבד ל-SR מוצגות גם הן כמדד לדיוק. המדדים כוללים: אורך הרכבה, עומק ממוצע, אזורי עומק אפס, אחוז כיסוי, שינוי מיקום, ואחוז דיוק לפני SR.
מדדי פלט ריצוף פלסמידים מבוססי ONT
ריצת הסיקוונס נקבעה ל-24 שעות. בסך הכל 24 דגימות עברו מולטיפלקס. הנתונים הטכניים של כל מדגם, כולל ציון איכות (Q), אורך וכיסוי, מפורטים בטבלה 9. ריצוף הננופורים יצר תפוקת קריאה ואיכות מספקת לכל הדגימות שנבדקו. בכל הספריות, הריצוף הניב בממוצע 134,115 קריאות לדגימה, התואם לתפוקה ממוצעת של 576.2 Mb. לקריאות היה אורך ממוצע של 8,797 bp עם ממוצע N50 של 3,693 bp, מה שסיפק רצף קריאה מספק להרכבת פלסמידים. ציון איכות הקריאה הממוצע היה Q16.0 עם חציון Q16.6, וריצות בודדות נעו בין Q13.7 ל-Q18.0.
| מתח רצף | קוראים (kb) | בסיסים (Mb) | אורך ממוצע | אורך מקסימלי | מינימום אורך | N50 | אורך חציוני | Q ממוצע | Q חציוני | |
| Blood_08_0081 תורם | 109.8 | 261 | 5713 | 508418 | 78 | 2377 | 1351 | 14.5 | 15 | |
| תורם Blood_08_0094 | 89.3 | 229 | 4177 | 114948 | 81 | 2565 | 1065 | 13.7 | 14 | |
| Blood_08_1447 תורם | 87.5 | 246 | 5041 | 135147 | 75 | 2816 | 1609 | 15.1 | 15.7 | |
| תורם Bblood_10_0913 | 247.7 | 1026 | 9260 | 174231 | 70 | 4143 | 1661 | 15.5 | 16.1 | |
| Blood_11_154 תורם | 51.5 | 110 | 4172 | 91148 | 73 | 2127 | 1387 | 16.1 | 16.5 | |
| תורם Blood_2011_0238 | 16.8 | 42 | 6707 | 104848 | 62 | 2534 | 845 | 15.3 | 15.2 | |
| תורם UPEC_108 | 50.6 | 77 | 1915 | 90234 | 67 | 1525 | 1103 | 15.8 | 16.2 | |
| תורם UPEC_134 | 50 | 143 | 7110 | 158393 | 72 | 2865 | 1133 | 16 | 16.2 | |
| UPEC_217 תורם | 64 | 236 | 7512 | 144275 | 78 | 3678 | 1895 | 17.4 | 17.9 | |
| UPEC_90 תורם | 52.9 | 157 | 5666 | 95944 | 72 | 2969 | 1593 | 16.8 | 17.2 | |
| Blood_08_0081 LMB100 טרנסקונוגנט | 53.5 | 119 | 5162 | 225856 | 1 | 2232 | 1009 | 16 | 16.8 | |
| Blood_08_0094 טרנסקונוגנט LMB100 | 160 | 442 | 7257 | 252176 | 1 | 2761 | 1083 | 17.3 | 18.2 | |
| Blood_08_1447 טרנסקונוגנט LMB100 | 238 | 1029 | 10249 | 209221 | 1 | 4320 | 1857 | 17.7 | 18.7 | |
| Blood_10_0913 טרנסקונוגנט LMB100 | 792.3 | 4341 | 11508 | 474325 | 1 | 5479 | 2731 | 17.7 | 18.8 | |
| Blood_11_184 טרנסקונוגנט LMB100 | 42.5 | 281 | 17931 | 146626 | 87 | 6615 | 2448 | 16 | 16.7 | |
| Blood_2011_0238 LMB100 טרנסקונוגנט | 147.7 | 585 | 9000 | 344203 | 1 | 3962 | 1781 | 18 | 18.9 | |
| UPEC_108 טרנסקונוגנט LMB100 | 173.4 | 778 | 10127 | 168756 | 80 | 4485 | 2079 | 15.3 | 16.1 | |
| UPEC_134 טרנסקונוגנט LMB100 | 105.4 | 667 | 17568 | 349230 | 71 | 6323 | 2232 | 15.5 | 16.3 | |
| UPEC_271 LMB100 טרנסקונוגנט | 74.2 | 336 | 14521 | 342195 | 83 | 4520 | 1306 | 14.6 | 14.8 | |
| UPEC_90 טרנסקונוגנט LMB100 | 75.2 | 418 | 15348 | 225661 | 83 | 5561 | 2016 | 15.7 | 16.4 | |
טבלה 9: דוח NanoQ של מדדי ריצוף פלט עבור פאנל של 10 זנים תורמים. מדדי הפלט של הרצף מפורטים. אלה כוללים קריאות, בסיסים, אורך (ממוצע, חציון, מקסימום ומינימום), אורך, N50 וערכים של Q (ממוצע וחציון) מתורמים וטרנסקונג'וגנטים.
הרכבת פלסמיד ודיוק
רצפי פלסמיד הורכבו באמצעות Autocycler34. גדלי רצפי הפלסמידים המורכבים עבור 10 מהדגימות מופיעים בטבלה 8, עמודה רביעית, ובכל המקרים הם תאמו את ההערכות המבוססות על ניידות PFGE (המפורטות בעמודה השלישית). הדיוק הוערך על ידי השוואת הרכבות לקריאה ארוכה מלוטשת במדקה לבין הרכבות Medaka (v2.2.0) פלוס פוליפוליש (v0.6.1). זהות הרצף חושבה באמצעות dnadiff מ-MUMmer (v3.2.4) (טבלה 8). בכל הפלסמידים שנותחו (n = 12), אורך הממוצע של ההרכבות היה 120.4 קילובטים ונתמכו בעומק ריצוף ממוצע של פי 109, עם כיסוי ממוצע של 97.9% על רצפי הפלסמידים. לפני הליטוש, להרכבות הייתה זהות רצף ממוצעת של 99.74% ביחס להרכבה המלוטשת ברצף SR.
הערכת זיהום כרומוזומי
כדי להעריך את כיסוי הפלסמידים וזיהום כרומוזומליים, הקריאות מופו לרצפי פלסמיד מורכבים ולרצף הכרומוזומי של E. coli LMB100. קריאות בסיסיות שנקראו Nanopore מיושרות באמצעות minimap2 (v2.2.6). יישורים שהתקבלו עובדו באמצעות SAMtools (v1.1.7) ליצירת קבצי BAM ממוינים ולחישוב סטטיסטיקות מיפוי. כיסוי הפלסמידים והעומק הממוצע הוערכו באמצעות כיסוי SAMtools. עומק ריצוף הפלסמידים השתנה בין דגימות אך נשאר גבוה בהרבה מהכיסוי המינימלי הנדרש להרכבה מדויקת (50–70 x). חלק קטן מהקריאות ממופו לכרומוזום, מה שמעיד על העברת DNA של המארח במהלך חילוץ הפלסמיד (טבלה 10).
| פלסמידים | סך כל הקריאות | קריאות כרומוזומליות | % קריאות כרומוזומליות | כיסוי כרומוזומי ממוצע | כיסוי פלסמידים ממוצע | יחס P:C |
| pBlood_08_0081_2 | 53491 | 20116 | 37.61% | 5 | 1068 | 236 |
| pBlood_d-08_0094 | 160024 | 74827 | 46.76% | 37 | 1618 | 44 |
| pBlood_08_1447 | 238031 | 127967 | 53.76% | 62 | 7842 | 127 |
| pBlood_10_0913_1 | 792263 | 221610 | 27.97% | 87 | 7801 | 90 |
| pBlood_10_0913_2 | 792263 | 221610 | 27.97% | 87 | 7772 | 89 |
| pBlood_11_184_1 | 42494 | 15919 | 37.46% | 7 | 1637 | 250 |
| pBlood_11_184_2 | 42494 | 15919 | 37.46% | 7 | 2188 | 335 |
| pBlood_2011_0238 | 147680 | 80526 | 54.53% | 56 | 2965 | 53 |
| pUPEC_108 | 173409 | 107884 | 62.21% | 61 | 4008 | 65 |
| pUPEC_134 | 105418 | 68645 | 65.12% | 29 | 3640 | 127 |
| pUPEC_271 | 74232 | 53554 | 72.14% | 34 | 1202 | 35 |
| pUPEC_90 | 75193 | 30052 | 39.97% | 16 | 4488 | 278 |
טבלה 10: הערכות זיהום DNA כרומוזומלי. זיהום כרומוזומי בפלסמידים שטוהר מזני המקבל נמדד כיחס הקריאות למיפוי לרצף הכרומוזום של LMB100 ביחס לקריאות הפלסמיד. לכל פלסמיד מופיעים קריאות פלסמיד, קריאות כוללות, קריאות כרומוזומליות, כיסוי כרומוזומי ממוצע, כיסוי פלסמיד ממוצע ויחס P:C. יש לשים לב pBlood_08_0081_1 חסר כי לא ניתן היה לשחזר אותו אצל המקבל, והערכות אלו בוצעו על המקבלים בשל הרקע הכרומוזומי האחיד שלהם.
זיהום כרומוזומלי נמדד כאחוז הקריאות המיפוי לרצף הכרומוזום המורכב של LMB100 ביחס לקריאות הפלסמידים. שיעורי הזיהום הכרומוזומלי נעו בין 72.1% ל-28.0%, עם ממוצע של 46.9% (טבלה 10). השיטה צפויה להעריך יתר על המידה את זיהום הכרומוזומים, משום שקריאות המיפוי הן לפלסמיד והן לכרומוזום נספרות ככרומוזומליות בלבד, אך היא עדיין מצביעה על העברת כרומוזומלית משמעותית. למרות ההעברה הכרומוזומלית הזו, תהליך ההרכבה שיחזר בהצלחה רצפי פלסמידים שלמים, שעדיין היו תואמים לגודל שנחזה מניידות PFGE בכל הדגימות (טבלה 8, עמודות שלישית ורביעית).
זוגות מייצגים של פלסמידים קונגוגטיביים בין תורם למקבל
הזן upec271 בודד מדגימת שתן בין 2011 ל-2013 והוקצה לפילוגרופ B2 ולסוג רצף ST131. ניתוח PFGE חשף נוכחות של רצועה התואמת לפלסמיד של כ-145 קילובארט [איור 3A, (תורם)]. ניתוח רצף קצר קריאה זיהה נוכחות של תגובת IncF.
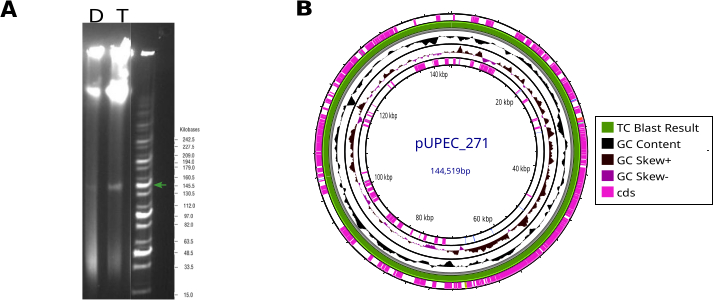
איור 3: אפיון של pUPEC271. (א) PFGE של תורם וטרנסקונוגנט. הרצועות של PFGE עבור התורם (D) והטרנסקונוגנט (T) מוצגות; החצים הירוקים מציינים את רצועת הפלסמיד התואמת ל-pUPEC271. הפרוטוקול שבו משתמשים ב-PFGE מתואר במחקר36. (ב) מפה של pUPEC271. הטרנסקונוגנט הופעל נגד התורם, והקונצנזוס (שהוא זהה ב-100%) מוצג כטבעת הירוקה. ייצוג זה נוצר באמצעות Proksee48. הטבעת החיצונית ביותר מציגה את מיקום ה-CDS, שתי טבעות פנימיות מציגות את תכולת ה-GC וההטיה, והטבעת הפנימית ביותר מציגה את מיקום גני ה-tRNA. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
העברת הפלסמיד הזה, שהמחברים כינו pUPEC271, אושרה עוד יותר על ידי ניתוח PFGE באמצעות הפרוטוקול שתואר קודםב-36 [איור 3A, T(טרנסקונג'וגנט)]. DNA פלסמיד שטוהר מזן התורם upec271 (pUPEC271_donor) רוצף באמצעות ננופור. בהתאם לגודל הרצועה בג'ל PFGE, רצף pUPEC271_donor חשף פלסמיד בגודל 144,519 bp (איור 3B). לפלסמיד זה היה רפליקון מסוג IncF והוא מכיל גנים עמידים לשש סוגי אנטיביוטיקה מובחנים (ראו טבלה משלימה 1). המחברים גם טיהרו DNA מאחד הטרנסקונג'וגנטים (pUPEC271_TC) וקיבלו רצף זהה לזה של התורם. ההרכבה הסופית, בהשוואה ל-pUPEC271_donor, מתוארת באיור 3B. זה אישר כי הפלסמיד הקונוגטיבי שהיה בתורם הועבר לזן הטרנסקונוגנטי. הנתונים הטכניים מוצגים בטבלה 9.
Sstress Blood_10_0913 הוא דוגמה לזן עם יותר מפלסמיד אחד. דגימה זו נאספה מדם בין 2008 ל-2013, וריצוף קצר הראה נוכחות של שני רפליקונים, IncF ורפליקון IncY. ניתוח PFGE של זן זה זיהה שני פלסמידים של כ-70 ו-110kb, בהתאמה (איור 4A). דבר זה אושר על ידי ריצוף ננו-נקבוביות, שהפיק שתי הרכבות, בגודל של 71,182 bp ו-111,226 bp, בהתאמה. המחברים קראו לשני הפלסמידים הללו pBlood_10_0913_1 ו-pBlood_10_0913_2 (איור 4B). עם זאת, ההרכבות בתחילה לא הצליחו לעגלי בגלל ההומולוגיה הרצף הנרחבת בקטע הפלסמידים הנושא את מנגנון הקונוגציה (החתך של הומולוגיה אקסיבית מודגש באיור 4B). דיאגרמת ההרכבה הכושלת, שנוצרה באמצעות תחבושת47 , מוצגת באיור 4C. ההרכבה המלאה של שני הפלסמידים הייתה אפשרית רק לאחר סינון קריאה אגרסיבי של רצפים קצרים (< 3000 bp).
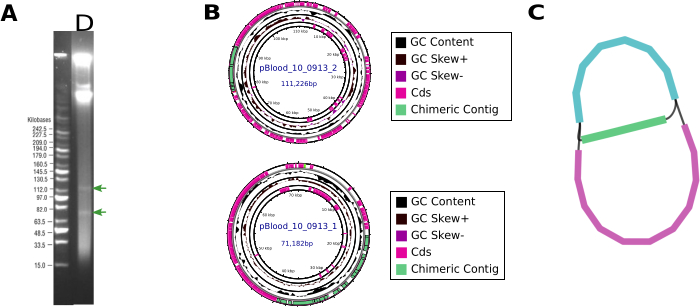
איור 4: זיהוי והרכבה של הפלסמידים של Blood_10_0913 הזן. (A) PFGE. החצים הירוקים מציינים רצועות פלסמיד. הפרוטוקול המשמש עבור PFGE מתוארב-36 (B) אסמבלי רצף. הרכבת שני הפלסמידים הקטנים יותר הנמצאים בדגימת pBlood_10_0913, pBlood_10_0913_2 ו-pBlood_10_0913_2. (ג) הרכבה כושלת. ייצוג של כשל הרכבה עקב נוכחות רצף משותף בין שתי הרכבות נפרדות. ייצוג זה נוצר באמצעות Bandage47. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
טבלה משלימה 1: גני עמידות הנישאים על ידי pUPEC271. גודל הפלסמיד, הרפליקונים והגנים העמידות הקשורים ל-pUPEC271 מוצגים. אנא לחצו כאן להורדת הקובץ הזה.
פקודות משלימות. אנא לחצו כאן להורדת הקובץ הזה.
דיון
זיהוי ואפיון הפלסמידים מעוררים עניין רב בבריאות הציבור, מיקרוביולוגיה קלינית ואקולוגיה מיקרוביאלית, שכן הם מסייעים בתחזוקה ובהפצת גנים אדפטיביים בסביבות אקולוגיות 1,5 ומשמשים כפלטפורמות לאבולוציה מואצת4. הכנסת טכנולוגיות NGS אפשרה ריצוף מהיר של גנומים של מבודדים מיקרוביאליים ואוכלוסיות, אם כי זיהוי לאחר ההרכבה של פלסמידים שלמים או של קונטיגים שמקורם בפלסמידים דורש בדרך כלל רצפים לקריאה ארוכה, שכן נתוני ריצוף קצרים אינם מסוגלים לזהות אזורים חוזרים גדולים מגודל הקריאות. ONT הפך לגישה פופולרית מאוד לריצוף ארוך טווח (ONT), עם יישומים החורגים מריצוף הגנום המלא ולמטגנומיקה, וכוללים אימות רצפי פלסמידים, זיהוי ואפיון של שינויים אפיגנטיים, ריצוף RNA, והערכת חוסר היציבות הפנימית של מערכי גנים טנדם (נבדקב-12,49).
כאן, החוקרים מציגים תהליך ריצוף ONT של פלסמידים, המיועד למצבים שבהם רצף הכרומוזומים כבר ידוע או אינו מעניין. הסיבה לכך היא שהפקת הפלסמידים היא עתירה עבודה, יקרה וגוזלת זמן (מכיוון שאוכלוסיית המארח צריכה להיות מוגדלת בתרבות ולעבד), וריצוף הגנום כולו באמצעות טכנולוגיית ננו-נקבוביות לעיתים קרובות מספיק כדי לקבל הרכבות פלסמידיות שלמות תוך מתן ההקשר הגנומי שלהם. דוגמאות שבהן הפרוטוקול מועיל כוללות אימות רצף פלסמיד בהקשר של הנדסה גנטית של פלסמיד50,51, שיפור דיוק רצפי הפלסמידים שכבר הושגו על ידי WGS24, או אפיון פלסמידים שנאספו מדגימות קליניות או סביבתיות באמצעות הצמדת פלסמידים.
הפקת DNA מדגימות קליניות וסביבתיות עשויה לדרוש התאמה אישית. כאן, המחברים מדווחים שחלק מהזנים הקליניים בהם השתמשו יצרו מטריצת ביופילם שסתמה את המסננים, מה שדרש שלבי פלטינג מרובים ולעיתים דרש הוספת שני מסננים. כמו כן, כדי לרצף פלסמידים קונוגטיביים, נדרש נפח תרבית גדול יותר יחסית לריצוף פלסמידים מרובי עותקים, שכן פלסמידים בגודל בינוני וגדול טבעיים נוטים להכיל עותק פלסמיד נמוךמספר 2.
הפרוטוקול אפשר ריצוף של פלסמידים בגודל שבין 4 ל-173 קילובייט. טווח זה נמצא במדויק במפרטי היצרן (בין 2 ל-200 קילובייט). לאחרונה, מחקר בחן 23,000 רצפי פלסמידים שהופקדו ב-NCBI ומצא הבדלים משמעותיים בגודל בהתאם למקור, כאשר פלסמידים ממקור אנושי הם בעלי הגודל החציוני הקטן ביותר (76 קילובייט), ופלסמידים בקרקע ובצמחים הגדולים ביותר (215 ו-427 קילובאט, בהתאמה); פלסמידים מכל המקורות האחרים היו בגודל חציוני בין 79 ל-147 קילובאל, ולכן פרוטוקול זה אמור לכלול את רוב הפלסמידים, שזה היוצא מן הכלל האפשרי של מגפלסמידים52 ופלסמידים ממקור הקרקע או הצמח3.
המחברים כוללים שלב העשרת DNA בפלסמידים לשיפור הדיוק של הרכבי DNA של הפלסמידים. נוכחות כמויות גדולות של DNA כרומוזומלי מציפה את נקבוביות התאים על תא זרימת הריצוף בקריאות לא מטרות, ומפחיתות משמעותית את עומק DNA הפלסמיד. שלב העשרת DNA בפלסמידים כבר יושם כדי לנסות להרכיב את ההרכבה המלאה של DNA פלסמיד בדגימות קליניות לצורך זיהוי ARGs24. הדבר הראה שיפורים משמעותיים ביעילות השלמת הרכבת הפלסמידים באמצעות רצף ננו-נקבוביים בלבד (78% הרכבות שלמות יחסית לנקודת הביצוע). דוגמאות נוספות הגיעובעקבות 50,53,54.
לשיפור דיוק הקריאה, שניים מהמחקרים הללו השתמשו בטכניקה שפותחה על ידי ננופור בשם "קריאת בסיס זוגית על קריאות מזויפות"50,53. גישה זו כוללת יישור האותות החשמליים הגולמיים מהחושים והאנטיסנס של אותה מולקולת DNA, מה שמוביל לשיפור בדיוק של בערך סדר גודל. קריאת בסיס זוג בקריאות פסאודו-זוגיות תואמת למולטיפלקסינג, כל עוד האסטרטגיה מאפשרת זיהוי הגדילים הקדמיים והאחוריים של אותה מולקולה. לכן, לא ניתן להשתמש בו בפלסמידים שטוהרו מדגימות של משלים פלסמידים לא ידוע או המכילים תערובת של פלסמידים. יש לשים לב שמספר הפלסמידים בגנום נע בדרך כלל בין 0 ל-7 פלסמידים (במיוחד בבידוד קליני)2,55.
החוקרים הבחינו ברמת זיהום כרומוזומלית גבוהה בדגימות (טבלה 10). רמת הזיהום של 10 דגימות שנותחו נעה בין 28 ל-72% בהתבסס על מיפוי קריאה. עם זאת, כאשר החוקרים נרמל את הרצף הזה לגודל הכרומוזום ביחס לזה של הפלסמיד או הפלסמידים הקיימים, נמצא כי רצפי הפלסמידים היו בממוצע נפוצים פי 144 יותר מרצפי הכרומוזומלים. תרגום מספר זה לרמת העשרת DNA בפלסמידים ידרוש לדעת את מספר העתקי הפלסמידים בכל דגימה.
תאי זרימת MinION בדרך כלל מפיקים פלט רצף של ~30 GB, מה שמאפשר תיאורטית ריצוף של מעל 96 פלסמידים בכל ריצה. בפועל, המולטיפלקסינג מוגבל גם על ידי מגבלת 96 ברקוד, מה שהופך את 96 פלסמידים לגבול העליון המעשי לכל תא זרימה. עם זאת, זיהום DNA כרומוזומי וחוסר איזון ברקוד טבעי מפחיתים את עומק הקריאה היעיל לכל דגימה. כדי להבטיח עומק קריאה מספק לכל דגימה, גישה שמרנית יותר היא מולטיפלקס של כ-24 פלסמידים לכל תא זרימה. העומק המומלץ להרכבה מדויקת של רצף הפלסמיד הוא בין 50 ל-70x32.56. בדוגמאות המהמחשות המוצגות במאמר זה, המחברים הריצו 21 דגימות מרובות בתא זרימה אחד וקיבלו עומק ממוצע (109x), המתאים היטב לאופטימיום הדגימה המומלץ לכל תא זרימה.
שימו לב שעם עומק קריאה עודף, מחיצות קריאה של עובר/כישלון פחות אינפורמטיביות להערכת איכות הקריאה הכוללת. במקום זאת, מדדים שמקורם בהתפלגות האורך מספקים ייצוג ברור יותר של איכות מערכי הנתונים. אחד המדדים הללו הוא ה-N50, המוגדר כאורך הקריאה שבו קריאות באורך זה או יותר מהוות 50% מהבסיסים הכוללים. ערך זה רגיש מאוד לשלבי בקרת איכות. לדוגמה, סינון קריאות באיכות נמוכה או קצרה עם כלים כמו Filtlong מסיר חלק משמעותי מהזנב הקצר של ההתפלגה, ובכך מנפח את ה-N50. אפקט זה ניכר בטבלה 9.
המחברים השתמשו בערכת הברקוד המהיר של ONT, המשתמשת בטרנספוזום לפירוק DNA של הפלסמיד, ולכן אינה דורשת ידע מוקדם על דפוס ההגבלה של הפלסמיד. מחקר קודם מצא שבפלסמידים קטנים (<20 קילובאט), יש צורך בפיצול אנזימטי משום שפלסמידים קטנים נשארים מעגליים ברוב מיצוי ה-DNA, ולכן אינם מכילים קצוות חופשיים לקשירת מתאם54. המחקר הזה לא השתמש בברקודים, שמייצרים קצוות חופשיים נוספים דרך הגברת PCR, ולכן במקרה הזה זה כנראה לא רלוונטי. OnRamp, אחד מהנהלים המתקדמים לאימות שגרתי של פלסמידים, נמנע משימוש בברקודים על ידי שימוש בקריאות פלסמיד באורך מלא להרכבה, ומפשט את הכנת הדגימה54. במקרה זה, המחברים העדיפו ברקודים משלוש סיבות. הראשון הוא לבנות הרכבה ללא קשר לאורך הפלסמיד. השנייה היא לסבול זיהום DNA כרומוזומי. השלישית היא שזה פותח אפשרות לריבוי מספר דגימות, כפי שנאמר לעיל.
מחקר קודם ציין כי האגרגציה של מרכיבים שונים שיפרה את התוצאה הסופית על ידי ביטול ההטיות המובנות בפלטפורמות הרכבה בודדות24. המטא-אנליזה הזו היא תכונה ששולבה בתוכנית ההרכבה שבה משתמשים המחברים, Autocycler34. בהשוואה לגרסה הקודמת שלו, שנקראה Trycycler57, Autocycler הוא מעט יותר אוטומטי; הוא משתמש במספר תת-קבוצות של הקריאות, ו(כפי שצוין קודם) הוא מבצע הרכבות עם מספר אסמבלים כדי ליצור אסמבלי קונצנזוס מדויק יותר. עם זאת, רוב המרכיבים, אפילו הטובים ביותר, כמו Flye28, Canu29 ו-Raven30, מתקשים עם נוכחות של פלסמידים עם הומולוגיית רצף נרחבת, מיזוג שגוי של רצפי פלסמידים, או יצירת עותקים מרובים של פלסמיד אחד, ונוטים להיעדר פלסמידיםקטנים 58,59 (ראו גם איור 4C). כאשר זה קורה, חיתוך קריאות באיכות נמוכה והסרת קריאות קצרות יכולים להוביל לפתרון קונטיגים כימריים.
כדי לקבוע את הדיוק הכולל של פרוטוקולי הריצוף, המחברים השוו את ההרכבות המבוססות על ONT בלבד לבין הרכבות מלוטשות על ידי שילוב קריאה ארוכה וקצרה, שהן (ללא נתוני PacBio) הסטנדרט הזהב הנוכחי. למחברים היו גם נתוני ג'ל שהראו את מספר הפלסמידים הקיימים ואת גודלם המוערך (טבלה 8, עמודה שלישית). החוקרים הצליחו להרכיב בהצלחה את כל 13 הפלסמידים שנמצאו בעשרת הדגימות וקיבלו גדלים תואמים לרצפים שהורכבו. זו הצלחה משמעותית, שכן מרכיבי רצף LR לעיתים קרובות לא מצליחים להרכיב פלסמידים עם רצפים מורכבים מבנית. ברמה מפורטת יותר, השוואות זוגיות בין שתי קבוצות הרצפים הצביעו על רמת דיוק משתנה (טבלה 8). חמש ממערכות הפלסמיד כללו אזורים ללא כיסוי ברכבי ONT, ככל הנראה כתוצאה מהוספת ארטיפקטית של רצף במהלך הרכבת הרצף של ONT בלבד. מתוך השבע הנותרים, שלושה הראו פולימורפיזמים של נוקלאוטידים בודדים, עם הבדלים זוגיים שנעו בין 0.0023 ל-0.05%, וארבעה הראו התאמה מושלמת. רמת הדיוק אינה נראית מתואמת לרמת העשרת DNA בפלסמיד או לעומק הריצוף, אך נוכחות של יותר מפלסמיד אחד בדגימה נתונה כן, ייתכן כי קיום של יותר מפלסמיד אחד נוטה להגביר את רמת המורכבות של הרצף (טבלה 8). לסיכום, תהליך העבודה מיועד לאופטימיזציה של תפוקת רצף הפלסמידים ודיוק. בעוד שהוא מסוגל להרכיב רצפי פלסמידים, הוא מייצר רמת דיוק משתנה ברמת הנוקלאוטידים. הפרוטוקול יכול לשמש לרצף פלסמידים במגוון גדלים, סובל לפחות 72% זיהום DNA כרומוזומלי, ויכול להכיל (בהתאם לגודל הפלסמיד ומצב תא הזרימה) לפחות 24 פלסמידים בתא זרימה יחיד.
גילויים
למחברים אין מה לחשוף.
תודות
אנו מודים מאוד לסטיב סליפנטה (אוניברסיטת וושינגטון) על ששיתף בנדיבות סט של זני E. coli קליניים שפורסמוב-45. עבודה זו נתמכה חלקית על ידי קרנות מחקר למינוי מנהל לחדשנות ופיתוח יזמות מ-UCSC ל-MC ומענק אוניברסיטת קליפורניה Alianza MX "פרופיל גנומי של מבודדי שחפת בקרב אוכלוסיות עם עומס גבוה ופגיעות במקסיקו: תובנות על העברה ועמידות לתרופות" ל-MC.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1.5 mL Eppendorf DNA LoBind tube | Sigma Aldrich | EP022431081 | ניתן להחליף למותג אחר |
| 1.5 mL tube racks | Thermo Fisher Scientific | 22-313630 | ניתן להחליף למותג אחר |
| 15 mL conical tubes | FALCON | 352096 | ניתן להחליף למותג אחר |
| 15 mL tube racks | Thermo Fisher Scientific | 8850 | ניתן להחליף למותג אחר |
| 2.0 mL microcentrifuge tubes | Fisherbrand | 05-408-138 | ניתן להחליף למותג אחר |
| 250 mL sterile flasks | PYREX | 5320 | ניתן להחליף למותג אחר |
| Carbenicillin | GOLD BIOTECHNOLOGY | C-103-50 | ניתן להחליף למותג אחר |
| Centrifuge | Eppendorf | 5424R-PR-R | ניתן להחליף למותג אחר |
| Centrifuge | Eppendorf | 5810R-P-R | ניתן להחליף למותג אחר |
| Centrifuge bottles | Sigma Aldrich | B1283-4EA | ניתן להחליף למותג אחר |
| Disposable Inoculating Loops: 1 µL | Fisherbrand | 22-363-595 | ניתן להחליף למותג אחר |
| Electronic Digital Scale | Denver Instrument | APX-2001 | ניתן להחליף למותג אחר |
| Ethanol | Fisher Scientific | 04-355-720 | ניתן להחליף למותג אחר |
| Ethanol-resistant markers | Sharpie | 37001; 37002; 37003 | ניתן להחליף למותג אחר |
| Flow cell (R10.4.1) | Oxford Nanopore Technologies | FLO-MIN114 | |
| Flow Cell Wash Kit | Oxford Nanopore Technologies | EXP-WSH004 | |
| Gloves | X-GEN | 44-100M | כל מותג כפפות נייטריל עובד |
| Ice bucket | Thermo Fisher Scientific | 432128 | ניתן להחליף למותג אחר |
| Isopropanol | Fisher Scientific | BP26184 | ניתן להחליף למותג אחר |
| MinION Sequencing Device | Oxford Nanopore Technologies | MIN-101B | |
| Native Barcoding Kit 96 V14 | Oxford Nanopore Technologies | SQK-NBD114.96 | |
| NucleoBond Xtra MIDI Plasmid DNA Extraction Kit | Takara | 740410.5 | |
| PCR tube racks | AXYGEN | R96PCRFSP | ניתן להחליף למותג אחר |
| PCR tubes: (0.2 mL) | AXYGEN | PCR-02-C | ניתן להחליף למותג אחר |
| Program autocycler v0.5.2 | Ryan Wick / University of Melbourne | ||
| Program bcftools v1.22 | Wellcome Sanger Institute (HTSlib / Samtools team) | ||
| Program bwa v0.7.19 | Heng Li, originally at the Broad Institute | ||
| Program canu v2.3 | University of California, Davis & Pacific Biosciences collaborators | ||
| Program flye v2.9.6 | University of California, San Diego (Pavel Pevzner lab) | ||
| Program medaka v2.1.1 | Oxford Nanopore Technologies | ||
| Program metamdbg v1.2 | INRIA | ||
| Program miniasm v0.3 | Heng Li | ||
| Program minimap2 v2.28 | Heng Li | ||
| Program minipolish v0.2.0 | Ryan Wick / University of Melbourne | ||
| Program porechop v0.2.4 | Ryan Wick / University of Melbourne | ||
| Program racon v1.5.0 | Genome Institute of Singapore | ||
| Program samtools v1.22.1 | Wellcome Sanger Institute (HTSlib / Samtools project) | ||
| Qubit™ 4 Fluorometer | Invitrogen | Q33226 | |
| Qubit™ Assay Tubes | Invitrogen | Q32856 | |
| Rapid Barcoding Kit 24 and 96 V14 | Oxford Nanopore Technologies | SQK-RBK114.96 | |
| Set of micropipettes that dispense between 1 – 10 μL (P10), 2 – 20 μL (P20), 20 – 200 μL (P200) and 200 – 1000 μL (P1000) | RAININ | 17008648; 17008650; 17008652; 17008653 | Micropipettes should be calibrated |
| Spectrophotometer | Thermo Scientific | 335905P | ניתן להחליף למותג אחר |
| Sterilized tips for 10 μL, 200 μL and 1000 μL | Eclipse | 1011-260-000-9; 1018-260-000; 1019-260-000-9 | |
| Thermal cycler C1000 Touch | Bio-Rad | 1851196 | ניתן להחליף למותג אחר |
| Water bath | Thermo Scientific | 51221052 | ניתן להחליף למותג אחר |
מקורות
- Finks, S. S., Martiny, J. B. H. Plasmid-encoded traits vary across environments. mBio. 14 (1), e0319122(2023).
- Ramiro-Martinez, P., de Quinto, I., Lanza, V. F., Gama, J. A., Rodriguez-Beltran, J. Universal rules govern plasmid copy number. Nat Commun. 16 (1), 6022(2025).
- Redondo-Salvo, S., et al. Pathways for horizontal gene transfer in bacteria revealed by a global map of their plasmids. Nat Commun. 11 (1), 3602(2020).
- Rodriguez-Beltran, J., DelaFuente, J., Leon-Sampedro, R., MacLean, R. C., San Millan, A. Beyond horizontal gene transfer: the role of plasmids in bacterial evolution. Nat Rev Microbiol. 19 (6), 347-359 (2021).
- Castaneda-Barba, S., Top, E. M., Stalder, T. Plasmids, a molecular cornerstone of antimicrobial resistance in the one health era. Nat Rev Microbiol. 22 (1), 18-32 (2024).
- Robertson, J., Bessonov, K., Schonfeld, J., Nash, J. H. E. Universal whole-sequence-based plasmid typing and its utility to prediction of host range and epidemiological surveillance. Microb Genom. 6 (10), (2020).
- Conlan, S., et al. Single-molecule sequencing to track plasmid diversity of hospital-associated carbapenemase-producing Enterobacteriaceae. Sci Transl Med. 6 (254), 254ra126(2014).
- Zankari, E., et al. Identification of acquired antimicrobial resistance genes. J Antimicrob Chemother. 67 (11), 2640-2644 (2012).
- Eyre, D. W., et al. WGS to predict antibiotic MICs for Neisseria gonorrhoeae. J Antimicrob Chemother. 72 (7), 1937-1947 (2017).
- Arredondo-Alonso, S., Willems, R. J., van Schaik, W., Schurch, A. C. On the (im)possibility of reconstructing plasmids from whole-genome short-read sequencing data. Microb Genom. 3 (10), e000128(2017).
- Rhoads, A., Au, K. F. PacBio sequencing and its applications. Genomics Proteomics Bioinformatics. 13 (5), 278-289 (2015).
- Zhang, T., et al. Nanopore sequencing: flourishing in its teenage years. J Genet Genomics. 51 (12), 1361-1374 (2024).
- González, A., Fullaondo, A., Odriozola, A. Why are long-read sequencing methods revolutionizing microbiome analysis? Microorganisms. 13 (8), (2025).
- Wick, R. R., Holt, K. E. Polypolish: Short-read polishing of long-read bacterial genome assemblies. PLoS Comput Biol. 18 (1), e1009802(2022).
- Delahaye, C., Nicolas, J. Sequencing DNA with nanopores: Troubles and biases. PLoS One. 16 (10), e0257521(2021).
- Watson, M., Warr, A. Errors in long-read assemblies can critically affect protein prediction. Nat Biotechnol. 37 (2), 124-126 (2019).
- De Maio, N., et al. Comparison of long-read sequencing technologies in the hybrid assembly of complex bacterial genomes. Microb Genom. 5 (9), (2019).
- Lerminiaux, N., Fakharuddin, K., Mulvey, M. R., Mataseje, L. Do we still need Illumina sequencing data? Evaluating Oxford Nanopore Technologies R10.4.1 flow cells and the Rapid v14 library prep kit for Gram-negative bacteria whole genome assemblies. Can J Microbiol. 70 (5), 178-189 (2024).
- Dabernig-Heinz, J., et al. A multicenter study on accuracy and reproducibility of nanopore sequencing-based genotyping of bacterial pathogens. J Clin Microbiol. 62 (9), e0062824(2024).
- Sereika, M., et al. Oxford Nanopore R10.4 long-read sequencing enables the generation of near-finished bacterial genomes from pure cultures and metagenomes without short-read or reference polishing. Nat Methods. 19 (7), 823-826 (2022).
- Wick, R. R., Judd, L. M., Holt, K. E. Assembling the perfect bacterial genome using Oxford Nanopore and Illumina sequencing. PLoS Comput Biol. 19 (3), e1010905(2023).
- Paterson, D. L. Resistance in gram-negative bacteria: enterobacteriaceae. Am J Med. 119 (1), discussion S62-70 S20-S28 (2006).
- Peter, S., et al. Tracking of antibiotic resistance transfer and rapid plasmid evolution in a hospital setting by nanopore sequencing. mSphere. 5 (4), (2020).
- George, S., et al. Resolving plasmid structures in Enterobacteriaceae using the MinION nanopore sequencer: assessment of MinION and MinION/Illumina hybrid data assembly approaches. Microb Genom. 3 (8), e000118(2017).
- Dong, N., Yang, X., Zhang, R., Chan, E. W., Chen, S. Tracking microevolution events among ST11 carbapenemase-producing hypervirulent Klebsiella pneumoniae outbreak strains. Emerg Microbes Infect. 7 (1), 146(2018).
- Lemon, J. K., Khil, P. P., Frank, K. M., Dekker, J. P. Rapid nanopore sequencing of plasmids and resistance gene detection in clinical isolates. J Clin Microbiol. 55 (12), 3530-3543 (2017).
- Linde, J., et al. Comparison of Illumina and Oxford Nanopore Technology for genome analysis of Francisella tularensis, Bacillus anthracis, and Brucella suis. BMC Genomics. 24 (1), 258(2023).
- Bickhart, D. M., et al. Generating lineage-resolved, complete metagenome-assembled genomes from complex microbial communities. Nat Biotechnol. 40 (5), 711-719 (2022).
- Koren, S., et al. Canu: scalable and accurate long-read assembly via adaptive k-mer weighting and repeat separation. Genome Res. 27 (5), 722-736 (2017).
- Vaser, R., Sikic, M. Time-and memory-efficient genome assembly with Raven. Nat Comput Sci. 1 (5), 332-336 (2021).
- Lynch, M. D., Neufeld, J. D. Ecology and exploration of the rare biosphere. Nat Rev Microbiol. 13 (4), 217-229 (2015).
- Kruasuwan, W., et al. Comparative evaluation of commercial DNA isolation approaches for nanopore-only bacterial genome assembly and plasmid recovery. Sci Rep. 14 (1), 27672(2024).
- Ulrich, J. U., et al. Nanopore adaptive sampling effectively enriches bacterial plasmids. mSystems. 9 (3), e0094523(2024).
- Wick, R. R., Howden, B. P., Stinear, T. P. Autocycler: long-read consensus assembly for bacterial genomes. Bioinformatics. 41 (9), (2025).
- NucleoBond Xtra Plasmid DNA Purification User Manual. , Takara Bio USA. Available from: https://www.takarabio.com/documents/User%20Manual/NucleoBond%20Xtra%20Plasmid%20DNA%20Purification%20User%20Manual_Rev_15.pdf?srsltid=AfmBOorkdYVlr34yclNUgmBCn4imrn-gbvTafmkD2Yrnnch6fH-K_VwZ (2019).
- Mota-Bravo, L., et al. Detection of horizontal gene transfer mediated by natural conjugative plasmids in E. coli. J Vis Exp. (193), (2023).
- Hancock, V., Witso, I. L., Klemm, P. Biofilm formation as a function of adhesin, growth medium, substratum, and strain type. Int J Med Microbiol. 301 (7), 570-576 (2011).
- Hung, C., et al. Escherichia coli biofilms have an organized and complex extracellular matrix structure. mBio. 4 (5), e00645-e00713 (2013).
- Qubit 4 assays quick reference (Pub. No. MAN0017210 C.0). , Thermo Fisher Scientific. (2025).
- Rapid barcoding sequencing kit 96 v14. , Oxford Nanopore Technologies. Available from: https://store.nanoporetech.com/us/rapid-barcoding-sequencing-kit-96-v14.html (2026).
- Schwengers, O., et al. Bakta: rapid and standardized annotation of bacterial genomes via alignment-free sequence identification. Microb Genom. 7 (11), (2021).
- Seemann, T. Prokka: rapid prokaryotic genome annotation. Bioinformatics. 30 (14), 2068-2069 (2014).
- Singh, H., et al. Integrons: the hidden architects of bacterial adaptation, evolution, and the challenges of antimicrobial resistance. Antonie Van Leeuwenhoek. 118 (7), 90(2025).
- Redondo-Salvo, S., et al. COPLA, a taxonomic classifier of plasmids. BMC Bioinformatics. 22 (1), 390(2021).
- Salipante, S. J., et al. Large-scale genomic sequencing of extraintestinal pathogenic Escherichia coli strains. Genome Res. 25 (1), 119-128 (2015).
- Couturier, A., et al. Real-time visualisation of the intracellular dynamics of conjugative plasmid transfer. Nat Commun. 14 (1), 294(2023).
- Wick, R. R., Schultz, M. B., Zobel, J., Holt, K. E. Bandage: interactive visualization of de novo genome assemblies. Bioinformatics. 31 (20), 3350-3352 (2015).
- Grant, J. R., et al. Proksee: in-depth characterization and visualization of bacterial genomes. Nucleic Acids Res. 51 (W1), W484-W492 (2023).
- MacKenzie, M., Argyropoulos, C. An Introduction to nanopore sequencing: past, present, and future considerations. Micromachines (Basel). 14 (2), (2023).
- Emiliani, F. E., Hsu, I., McKenna, A. Multiplexed assembly and annotation of synthetic biology constructs using long-read nanopore sequencing. ACS Synth Biol. 11 (7), 2238-2246 (2022).
- Brown, S. D., Dreolini, L., Wilson, J. F., Balasundaram, M., Holt, R. A. Complete sequence verification of plasmid DNA using the Oxford Nanopore Technologies' MinION device. BMC Bioinformatics. 24 (1), 116(2023).
- Hall, J. P. J., Botelho, J., Cazares, A., Baltrus, D. A. What makes a megaplasmid? Philos Trans R Soc Lond B Biol Sci. 377 (1842), 20200472(2022).
- Brown Kav, A., Benhar, I., Mizrahi, I. A method for purifying high-quality and high-yield plasmid DNA for metagenomic and deep sequencing approaches. J Microbiol Methods. 95 (2), 272-279 (2013).
- Mumm, C., et al. Multiplexed long-read plasmid validation and analysis using OnRamp. Genome Res. 33 (5), 741-749 (2023).
- Balbuena-Alonso, M. G., et al. Genomic analysis of plasmid content in food isolates of E. coli strongly supports its role as a reservoir for the horizontal transfer of virulence and antibiotic resistance genes. Plasmid. 123-124, 102650(2022).
- Zhao, W., et al. Oxford nanopore long-read sequencing enables the generation of complete bacterial and plasmid genomes without short-read sequencing. Front Microbiol. 14, 1179966(2023).
- Wick, R. R., et al. Trycycler: consensus long-read assemblies for bacterial genomes. Genome Biol. 22 (1), 266(2021).
- Johnson, J., Soehnlen, M., Blankenship, H. M. Long read genome assemblers struggle with small plasmids. Microb Genom. 9 (5), (2023).
- Boostrom, I., Portal, E. A. R., Spiller, O. B., Walsh, T. R., Sands, K. Comparing long-read assemblers to explore the potential of a sustainable low-cost, low-infrastructure approach to sequence antimicrobial resistant bacteria with Oxford Nanopore sequencing. Front Microbiol. 13, 796465(2022).
הדפסות חוזרות והרשאות
