מחקר זה זיהה גנים משותפים, מסלולים ביולוגיים, אסוציאציות חיסוניות ומטרות טיפוליות פוטנציאליות הבסיס לסוכרת סוג 2 ומחלות לב וכלי דם אטרוסקלרוטיות באמצעות ביואינפורמטיקה משולבת ואימות ניסיוני.
מאמר מחקר
מנגנונים מולקולריים נפוצים ומטרות מועמדות לתרופות בסוכרת סוג 2 ומחלות לב וכלי דם טרשת עורקים
במאמר זה
סיכום
תקציר
מחקר זה בחן את המנגנונים העומדים בבסיס המחלה הנלווית בין סוכרת סוג 2 (T2DM) למחלת לב וכלי דם טרשת עורקים (ASCVD), תוך זיהוי מטרות טיפוליות פוטנציאליות. גנים מבוטאים באופן שונה נפוצים (C-DEGs) בין T2DM ל-ASCVD הוצאו ממאגרי הנתונים GSE78721 ו-GSE12288. בוצעו ניתוחי העשרת מסלולים של אונטולוגיית גנים (GO) ואנציקלופדיה של קיוטו לגנים וגנומים (KEGG), בניית רשת אינטראקציה בין חלבון לחלבון (PPI), זיהוי גנים מרכזיים וניתוח מאגר אינטראקציות בין תרופות לגנים (DGIdb). הקשר בין C-DEGs מרכזיים לתאים חודרים לחיסונים נותח באמצעות שיטת CIBERSORT. רמות הביטוי של C-DEGs בציר נמדדו באמצעות qRT-PCR וניתוחי ווסטרן בלוט. זוהו בסך הכול 32 C-DEGs, הכוללים 20 גנים מוגברים ו-12 גנים עם ויסות נמוך יותר. C-DEGs הועשרו בעיקר במסלולים מרכזיים, כולל מיוקרדיטיס ויראלית, קרדיומיופתיה חדרית ימין הפרעתעתית, קרדיומיופתיה היפרטרופית וקרדיומיופתיה מורחבת. ניתוח PPI חשף 29 צמתים ו-39 קשתות, מה שהוביל לזיהוי שמונה C-DEGs מרכזיים (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C ו-CS) בשני מערכי הנתונים. יתרה מזאת, C-DEGs במרכז (TOP3A, SLPI, NCF4, PRF1 ו-PLAU) הראו מתאמים משמעותיים עם רמות תאים חודרות לחיסון. תרופות המיועדות במיוחד ל-C-DEGs המרכזיים הללו מציגות מועמדים מבטיחים לטיפול ב-T2DM וב-ASCVD. בנוסף, ביטוי C-DEGs של hub ברמות mRNA וחלבון אומת במטופלים עם T2DM ו-ASCVD. ניתוח ביואינפורמטיקה משולב אפשר סינון של מטרות, מנגנונים ותרופות טיפוליות מועמדות ל-T2DM ו-ASCVD, והציע תובנות חדשות על טיפולים מולקולריים למצבים אלו.
מבוא
סוכרת (DM) היא מחלה כרונית עם אתיולוגיה מורכבת המושפעת מגורמים גנטיים וסביבתיים שונים, המשפיעה כיום על כ-463 מיליון אנשים ברחבי העולם, וצפויה לעלות ל-700 מיליון עד 2045. סוכרת סוג 2 (T2DM) היא מצב רב-גורמי המאופיין בעמידות לאינסולין ובחוסר יחסי באינסולין הנגרם מכשל תאי בטא, המוביל להיפרגליקמיה ודיסליפידמיה, ומהווה 90% ממקרי DM 3,4,5. עמידות לאינסולין משמשת כמבשר מרכזי להפרעות מטבוליות רבות בלב וכלי דם, אשר ביחד מסייעות להתפתחות מחלת לב וכלי דם טרשת עורקים (ASCVD) ועלולות להשפיע על התחזית שלה. מחלת עורקים כליליים (CAD) נובעת בעיקר מהצטברות הדרגתית של חומר טרשת עורקים, הגורמת להיצרות האור ולחסימת זרימת הדם8. טרשת עורקים מונעת על ידי גורמים רבים, כולל היפרכולסטרומיה וסוכרת. העומסים האנושיים והכלכליים המשמעותיים הקשורים ל-T2DM ו-CAD, יחד עם האתגרים בניהול ארוך הטווח שלהם, מדגישים את הצורך הדחוף באסטרטגיות מניעה אפקטיביות.
מטופלים עם CAD ו-T2DM במקביל מתמודדים עם סיכון גבוה משמעותית לאירועים לביים11. מחלות לב וכלי דם (CVD) הן סיבוך נפוץ של סוכרת סוג 2 ומייצגת את הסיבה המובילה לתמותה בקרב חולי סוכרת סוג 2, כאשר כ-32.2% מהם מושפעים ממחלת לבוכלי דם 12. תת-המחקר LoDoCo2 מאשר כי T2DM נלווה קשור לסיכון מוגבר לאירועים קרדיווסקולריים שליליים משמעותיים באוכלוסיות CAD כרוניות13. אנשים עם סוכרת סוג 2 נמצאים בסיכון מוגבר ל-ASCVD14,15, ואנשים עם CAD כרוני שגם הם סובלים מסוכרת נושאים בסיכון גבוה משמעותית לאירועים קרדיווסקולריים נוספים16, מה שמדגיש צורך קריטי שלא נענה באפשרויות טיפול חדשניות.
מספר הולך וגדל של קבוצות מחקר מסננות גנים חדשים בביטוי דיפרנציאלי (DEGs) ב-T2DM וב-ASCVD באמצעות ניתוחים מקיפים של נתונים טרנסקריפטומיים ממאגרי מידע שונים. המאמצים מתמקדים בהבהרת הקשר בין מחלות אלו ובזיהוי תפקודים ביולוגיים יעילים. מחקרים ביואינפורמטיים עדכניים חקרו את T2DM בהקשר למצבים אחרים; לדוגמה, סונג ואח' זיהו DEGs משותפים בין T2DM לאוסטיאוארתריטיס17, קסטיו-ולסקז ואחרים חזו את הקשר בין מחלת האלצהיימר ל-DM18, וגנים ונתיבים חשובים ב-T2DM ותסמונת השחלות הפוליציסטיות זוהו באמצעות ניתוח ביואינפורמטיקה19. עם זאת, המנגנונים המולקולריים המקשרים בין T2DM ל-ASCVD עדיין אינם מובנים היטב, מה שמדגיש את חשיבות זיהוי מטרות טיפוליות פוטנציאליות חדשות לטיפול בהתקדמות שני המצבים.
מחקר זה שואף לזהות באופן שיטתי מסלולים מולקולריים משותפים ומטרות טיפוליות פוטנציאליות בין T2DM ל-ASCVD על ידי ביצוע ניתוח ביואינפורמטי משולב של נתוני טרנסקריפטומיה ממאגרי הנתונים של GSE78721 (T2DM) ו-GSE12288 (ASCVD). מערכי הנתונים הללו נבחרו בשל אספקת דגימות תואמות של מטופלים וביקורת לכל מחלה, תוך שימוש בפלטפורמות מיקרו-אריי דומות לניתוח השוואתי איתן. הגישה הנוכחית כללה זיהוי DEGs נפוצים (C-DEGs), ביצוע ניתוחי העשרה פונקציונלית ואינטראקציות חלבונים, הערכת קשרים לחדירת מערכת חיסונית וחיזוי תרופות מקשרות. בנוסף, בוצע אימות ניסויי ראשוני. עבודה זו מספקת תובנות חדשות ויעדים מועמדים להבנת המחלה הנלווית של T2DM ו-ASCVD.
פרוטוקול
פרוטוקול מחקר זה נבדק ואושר על ידי הוועדה לביקורת מוסדית לאתיקה של אוניברסיטת נינגשיה לרפואה (מספר הפניה של ועדת ביקורת פנימית: אתיקה [2023]-YCSKT-002) והתאים לעקרונות המפורטים בהצהרת הלסינקי. התקבלה הסכמה בכתב מכל המטופלים המעורבים במחקר לפני השתתפותם.
מקורות נתוני ביטוי עבור T2DM ו-ASCVD
נתוני ביטוי גנים עבור T2DM ו-ASCVD התקבלו ממאגרי הנתונים GSE78721 ו-GSE12288, בהתאמה, שמקורו במאגר GEO. שני מערכי הנתונים השתמשו בנתוני מיקרו-מערך מ-[PrimeView] Affymetrix Human Gene Expression Array ומפלטפורמות [HG-U133A] Affymetrix Human Genome Array U133A. מערך הנתונים GSE78721 כלל נתוני ביטוי מ-68 חולי סוכרת סוג 2 ו-62 מדגמים תקינים (פרטים בטבלה משלימה 1), בעוד שמערך הנתונים GSE12288 כלל נתוני ביטוי מ-110 דגימות ASCVD ו-112 מקרים תקינים (פרטים בטבלה משלימה 2). גשושי גנים הומרו לסמלי הגנים המתאימים שלהם בהתבסס על מידע האנוטציה של הפלטפורמה.
זיהוי גנים מבוטאים באופן שונה ב-T2DM וב-ASCVD
לאחר הורדת הנתונים ממסד הנתונים GEO, מטריצות ביטוי גולמיות עבור T2DM ו-ASCVD תוקנו ונרמלו באמצעות חבילת התוכנה "limma" לזיהוי DEGs. הוחל סף של P < 0.05 לצורך סקר DEG. תוצאות ביטוי דיפרנציאלי הוצגו באמצעות חבילות 'מפת חום' ו-'ggplot2' R ליצירת מפת חום וגרף הר געש, בהתאמה. C-DEGs בין T2DM ל-ASCVD זוהו באמצעות דיאגרמת ון.
אנליזי העשרת מסלולים פונקציונליים של אנציקלופדיה גנטית (GO) ואנציקלופדיה קיוטו לגנים וגנומים (KEGG) של C-DEGs
פונקציות ומסלולים ביולוגיים נקבעו באמצעות ניתוחי העשרת מסלולי GO ו-KEGG. הארגון R package. Hs.eg.db שימש להמרת שמות C-DEG למזהי גנים, וניתוח העשרת GO בוצע באמצעות חבילות R clusterProfiler, enrichplot, ggplot2 ו-GOplot כדי לחקור פונקציות ביולוגיות משותפות של C-DEGs. בהמשך, בוצע ניתוח KEGG לזיהוי מסלולים משמעותיים משותפים המעורבים במנגנונים המולקולריים העומדים בבסיס המחלה הנלווית של T2DM ו-ASCVD. תוצאות העשרת GO ו-KEGG הוצגו בתרשימי עמודות המדגימים ספירת גנים, תיאורים פונקציונליים וערכי P , כאשר מובהקות סטטיסטית הוגדרה כ-P < 0.05.
ניתוח רשת אינטראקציה בין חלבון לחלבון (PPI) של C-DEGs
במחקר זה הוגדרו C-DEGs וגני המרכז כגנים משותפים. כדי להעריך את הקשרים הפונקציונליים בין הגנים המשותפים הללו, נבנתה רשת PPI באמצעות מסד הנתונים STRING (https://string-db.org). הניתוח החל בבחירת "חלבונים מרובים" תחת פונקציית "SEARCH" והזנת שמות C-DEG תוך ציון המין כ"Homo sapiens". הפרמטרים הבסיסיים ל-C-DEGs הוגדרו כך שיציגו את רשת הרגולציה של PPI. ההמחשה של רשת ה-PPI בוצעה באמצעות תוכנת Cytoscape (גרסה 3.9.1) (https://apps.cytoscape.org/), שסיפקה ייצוג גרפי של אינטראקציות בין C-DEGs. ה-Hub C-DEGs זוהו בתוך רשת ה-PPI באמצעות תוסף CytoHubba ב-Cytoscape, בהתבסס על אלגוריתם דירוג דרגות.
ניתוח חדירת תאי חיסון
כדי לבחון את ההבדלים בחדירת תאי החיסון בין קבוצת T2DM לקבוצת הביקורת התקינה, שימשה שיטת CIBERSORT להערכת שפע סוגי תאים חודרים לחיסון. אלגוריתם הבדיקה וילקוקסון יושם לאחר מכן כדי להשווות את הפרופורציות של תאי החיסון החודרים בין דגימות T2DM לדגימות ביקורת, ובכך הקלה על הערכת ההבדלים שנצפו. ההמחשה של הנתונים הושגה באמצעות גרפים של כינור. כדי לאמת את המתאם בין C-DEGs לתאים חודרים לחיסון, נעשה שימוש בחבילות R כגון limma, scales, tidyverse ו-ggplot2 לחישוב מקדמי קורלציה של ספירמן. שלב זה כימות את הקשר בין ביטוי C-DEG לרמות חדירת תאי חיסון, כאשר התוצאות הוצגו כמפות חום. ערך P של פחות מ-0.05 נחשב מובהק סטטיסטית.
ניתוח אינטראקציה של C-DEGs מרכזיים עם תרופות ממוקדות פוטנציאליות
מאגר האינטראקציות בין תרופות לגנים (DGIdb) מספק קטלוג מקיף של אינטראקציות בין תרופות לגנים ופרופילים גנטיים של סוכנים טיפוליים מאושרים ופוטנציאליים. במחקר זה, רשימת C-DEGs של המרכז הוזנה למסד הנתונים כדי לאסוף מידע על אינטראקציה בין C-DEGs של המרכז לבין התרופות המיועדות הפוטנציאליות שלהם, שהוצג לאחר מכן באמצעות תוכנת Cytoscape.
אימות ניסויי של גנים מרכזיים באמצעות דגימות קליניות
כדי לאמת בניסוי את הגנים המרכזיים, נאספו דגימות דם היקפיות מנבדקים קליניים. קבוצת המחקר כללה קבוצת ניסוי וקבוצת ביקורת. קבוצת הניסוי כללה 15 מטופלים שאובחנו עם סוכרת סוג 2 ו-ASCVD, שמייצג מצב נלווי. קבוצת הביקורת כללה 10 מתנדבים בריאים תואמים לגיל ולמין ללא היסטוריה של סוכרת, מחלות לב או מחלות מערכתיות קשות אחרות. כל המטופלים בקבוצת הניסוי אובחנו באופן סופי בהתאם להנחיות קליניות שנקבעו ל-T2DM ול-ASCVD.
תגובת שרשרת פולימראז כמותית בזמן אמת (qRT-PCR)
סך ה-RNA בודד באמצעות תגובת טריזול, ו-cDNA של הגזר הראשון סונתז עם ערכת מערכת שעתוק הפוך. ה-cDNA מדולל לאחר מכן ל-qRT-PCR באמצעות תערובת SYBR-green PCR Master, כאשר GAPDH משמש כבקרה פנימית. שינויים יחסיים בקפלים בביטוי חושבו בשיטת 2−ΔΔCt . הפריימרים ששימשו לניתוח היו: TUBA1C-קדימה: 5′-GACCTCGTGTTGGGGACCGAAT-3′ והפוך: 5′-CGAGGTGAACCCAGAACCAG-3′; NCF4-קדימה: 5′-CTAAGTTTCAAAGCTGGGAGATGGG-3′ והפוך: 5′-GAATTCCTGAAAGGGCTCTG-3′; PRF1-קדימה: 5′-CCCAGTGGACACACAAGGTT-3′ והפוך: 5′-TCGTTGCGGATGCTACGAG-3′; SLPI-קדימה: 5′-CCCTTCCTGGTGCTGCTGTT-3′ והפוך: 5′-CCTCCTTGTGTGTGTGTGG-3′; HSP90B1-קדימה: 5′-CCGAAGAAGAACCTGAAGAG-3′ והפוך: 5′-CATCTGTTCCCACATCCATT-3′; PLAU-קדימה: 5′-GGGGAGATGAGTGTGTGTGGG-3′ והפוך: 5′-GCAATGTGTGTGTGTGTGGC-3′; GAPDH-קדימה: 5′-CAGGGCTGCTTTTAACTGG-3′ והפוך: 5′-GGGTGGGAATCATATTGGAACA-3′.
בדיקת כתם מערבי
החלבון הכולל בודד, דולל בבופר הטעינה, והופרד על ידי 10% SDS-PAGE, ולאחר מכן הועבר לממברנות PVDF. הממברנות נחסמו ונבדקו בנוגדנים ראשוניים ספציפיים, כולל אנטי-TUBA1C (1:1000, ab222849), אנטי-HSP90B1 (1:1000, ab238126), אנטי-NCF4 (1:1000, 14648-1-AP), אנטי-PRF1 (1:1000, ab256453), אנטי-SLPI (1:1000, ab46763), אנטי-PLAU (1:1000, 17968-1-AP), ואנטי-GAPDH (1:5000, 10494-1-AP). נוגדנים משניים הוצמדו עם פרוקסידאז חזרת (HRP) (1:2000, ab6721), והוצגו רצועות באמצעות סובסטרט כימילומינסנטי משופר (ECL).
ניתוח סטטיסטי
ניתוח סטטיסטי בוצע באמצעות תוכנת GraphPad Prism, כאשר הנתונים הוצגו כממוצע ± SD. ההבדלים בין הקבוצות הוערכו באמצעות מבחן ה-t של הסטודנט, וערך P של פחות מ-0.05 נחשב מובהק סטטיסטית.
תוצאות
זיהוי DEGs
שני מערכי נתונים, GSE78721 ו-GSE12288, שימשו לניתוח ביואינפורמטיקה במחקר זה. בשנת GSE78721 זוהו סך הכל 2,266 DEGs בין חולי סוכרת סוג 2 לבין מדגמים תקינים, הכוללים 1,209 גנים עם ויסות גבוה ו-1,057 גנים עם ויסות נמוך (איור 1A). בשנת GSE12288, אומתו 924 DEGs בין חולי ASCVD לביקורת, כולל 403 גנים שהובעו יתר על המידה ו-521 שהיו מופחתת (איור 1C). 50 ה-DEGs המובילים שזוהו בשני מערכי הנתונים מיוצגים במפות חום המוצגות באיור 1B,D. על ידי חציית שני מערכי הנתונים הללו, זוהו 32 C-DEGs, הכוללים 20 גנים מופרזים ו-12 גנים עם ויסות נמוך (איור 2A,B).
העשרת GO ו-KEGG של C-DEGs
כדי להבהיר את התפקודים הביולוגיים והמסלולים המרכזיים הקשורים ל-32 C-DEGs, בוצעו ניתוחי GO ו-KEGG. עשרת המונחים המובילים הקשורים לתהליך ביולוגי (BP), רכיב תאי (CC) ותפקוד מולקולרי (MF) בקרב C-DEGs מוצגים באיור 3A. הפונקציות של BP כוללות בעיקר ויסות של הפעלת פלסמינוגן, ויסות פיברינוליזה, ויסות חיובי של התמיינות קרדיוציטים, ויסות שלילי של קישור חלבונים, והבדלת קרדיובלסטים. פונקציות ה-CC מתייחסות לקומפלקס אנדופפטידאז מסוג סרין, קומפלקסים חלבונים המעורבים בהיצמדות מטריצת תאים, כרומוזום מעובה, ממברנת גרנולה ספציפית וגוף PML. ה-MF כולל רכיבים מבניים של שלד הציטוסקלטון, פעילות מפעיל NADPH אוקסידאז המייצרת סופר-חמצן, פעילות טרנספראז תוך-מולקולרית (פוספוטרנספראזות), פעילות אקסופפטידאז מסוג סרין, וקשירת IgG (איור 3A). מבחינת ניתוח KEGG, ה-C-DEGs היו מעורבים בעיקר במסלולים קריטיים, כולל מיוקרדיטיס ויראלי, קרדיומיופתיה חדרית ימין הפרעתעתית, מפלסים של משלים וקרישה, סרטן הערמונית, קרדיומיופתיה היפרטרופית, קרדיומיופתיה מורחבת, אפופטוזיס, פגוזום ועיבוד חלבונים ברשתית האנדופלזמית (איור 3B).
בניית רשתות PPI וסינון גנים מרכזיים
מבין 32 ה-C-DEGs, שלושה גנים לא הראו אינטראקציות ידועות עם C-DEGs אחרים במסד הנתונים של STRING ולכן הוצאו מבניית רשת ה-PPI. פלטפורמת STRING שימשה לניתוח PPI של 29 ה-C-DEGs הנותרים, וחשפה רשת המורכבת מ-29 צמתים ו-39 קשתות, שהודגשה באמצעות Cytoscape (איור 4A). בהמשך, זוהו שמונה C-DEGs של המרכז (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C ו-CS) בהתבסס על דרגת הקישוריות שלהם (איור 4B).
הבדלים בחדירת תאי חיסון והקשר שלהם עם C-DEGs במרכז
ניתוח זה התמקד אך ורק במאגר הנתונים של T2DM (GSE78721) כדי לחקור באופן ראשוני שינויים במיקרו-סביבה החיסונית בהקשר של T2DM והקשר שלהם לגני האב. תרשימי כינור שימשו להמחשת הקשר בין מאגר הנתונים של T2DM לבין רמות החדירה של 22 סוגי תאי מערכת החיסון (איור 5A; פרטים בטבלה משלימה 3). ניתוח חדירת תאי החיסון הצביע על שיעור גבוה יותר של תאי דנדריט מופעלים בקבוצת T2DM בהשוואה לקבוצת הביקורת (P = 0.049), בעוד ששיעור התאים הדנדריטיים במנוחה היה נמוך משמעותית בקבוצת T2DM (P = 0.023). יתרה מזאת, הקשר בין רמות הביטוי של שמונת תאי ה-C-DEGs במרכז לבין רמות החדירה של 22 סוגי תאי החיסון השונים הוצג באמצעות מפת חום (איור 5B). ראוי לציין כי ביטוי TOP3A הראה קורלציה חיובית חזקה עם רמת החדירה של תאי T רגולטוריים (Tregs) (P < 0.001), בעוד שביטוי SLPI היה בקורלציה חיובית חזקה לחדירת תאי T של גמא דלתא (P < 0.001). לעומת זאת, ביטוי NCF4 הראה מתאם שלילי חזק לרמת החדירה של תאי NK מופעלים (P < 0.001), ביטוי PRF1 היה בקורלציה שלילית חזקה לרמת החדירה של מקרופאגים M2 (P < 0.001), וביטוי PLAU היה קשור שלילית חזקה לרמת החדירה של תאי B נאיביים (P < 0.001).
רשת מועמדת למטרה לתרופות עבור C-DEGs מרכזיים
מבין שמונת ה-Hub C-DEGs שזוהו, CS ו-TOP3A לא נרשמו כמטרות תרופות ידועות במסד הנתונים של DGIdb ולכן הוצאו מניתוח רשת תרופות-יעד מועמדות לאחר מכן. כדי לזהות תרופות עם תפקידים טיפוליים פוטנציאליים ב-T2DM וב-ASCVD, ששת ה-Hub C-DEGs הנותרים הוגשו למאגר הנתונים של DGIdb (פרטים בטבלה המשלימים 4). בהמשך, Cytoscape שימש לבניית רשת מועמדת למטרות תרופות הממחישה את הקשרים בין C-DEGs מרכזיים לתרופות ממוקדות מועמדות (איור 6). רשת זו כללה שישה מרכזי C-DEG, 136 תרופות מולקולריות ו-137 קשתות. בפרט, זוהו 82, 5, 3, 4, 1 ו-42 תרופות מטרה מועמדות ל-TUBA1C, NCF4, PRF1, SLPI, HSP90B1 ו-PLAU, בהתאמה, כאשר רובם סווגו כסוכנים אנטי-נאופלסטיים, נוגדי דלקת וסוכנים אנטי-טרומבוטיים.
אימות ביטוי C-DEGs של המרכז
עקב היעדר CS ו-TOP3A כמטרות תרופות מועמדות במסד הנתונים של DGIdb ותפקידיהם הביולוגיים שפחות קשורים ישירות לאסטרטגיות טיפוליות בהקשר של מחקרי T2DM ו-ASCVD, המחקר התמקד בששת ה-Hub C-DEGs הנותרים (HSP90B1, PLAU, SLPI, NCF4, PRF1 ו-TUBA1C) לאימות ניסיוני. כדי לבחון לעומק את תפקידיהם של ה-Hub C-DEGs, בוצעו בדיקות qRT-PCR ו-Western Blot כדי להעריך את רמות הביטוי של גנים מרכזיים בקבוצות שונות (איור 7 ואיור 8). רמות הביטוי של TUBA1C, NCF4, SLPI, HSP90B1 ו-PLAU היו גבוהות באופן משמעותי אצל מטופלים עם T2DM ו-ASCVD בהשוואה לקבוצות ביקורת בריאות מתאימות, בעוד שהביטוי PRF1 היה מופחת. ממצאים אלו מצביעים על כך שגנים מרכזיים אלו עשויים למלא תפקיד משמעותי בהתקדמות חולים עם T2DM ו-ASCVD.
זמינות נתונים:מערכי הנתונים של ביטוי גנים GSE78721 ו GSE12288 המשמשים לניתוח ביואינפורמטיקה במחקר זה זמינים במאגר הנתונים הציבורי של NCBI GEO. הנתונים הגולמיים מחלק האימות הניסויי שנוצר במחקר זה מסופקים בקובץ המשלים 1.
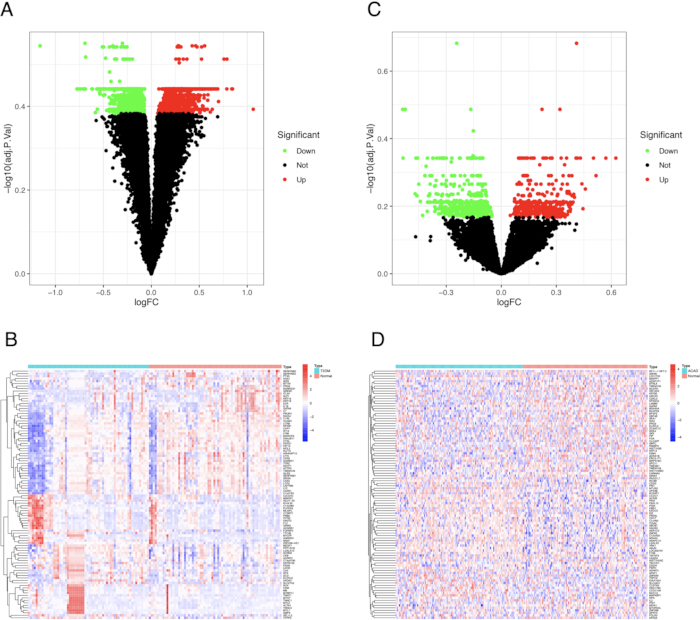
איור 1: זיהוי DEGs במאגרי הנתונים GSE78721 ו-GSE12288. (A,C) הגרפים של DEGs של הרי געש ב-GSE78721 ו-GSE12288, בהתאמה. |logFC|≥ 0.5 ו-P < 0.05 נקבעו כסף הסינון; הגנים המוסדרים סומנו כאדומים, והגנים שהועברו למטה סומנו כירוקים. (B,D) מפות חום של 50 ה-DEGs המובילים ב-GSE78721 ו-GSE12288, בהתאמה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
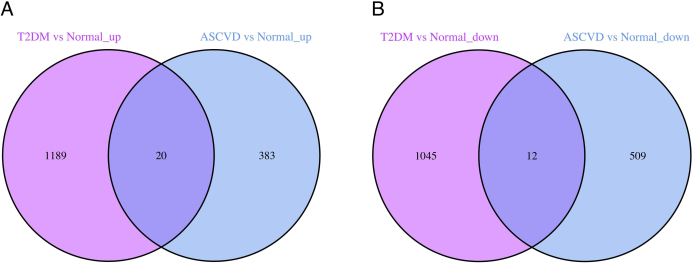
איור 2: דיאגרמת ון של C-DEGs משני מערכי נתונים. (A) דיאגרמת Venn של C-DEGs מוגברים מ-T2DM ו-ASCVD במאגרי נתונים GSE78721 ו-GSE12288. (B) דיאגרמת ון של C-DEGs מופחת מ-T2DM ו-ASCVD במאגרי נתונים GSE78721 ו-GSE12288. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
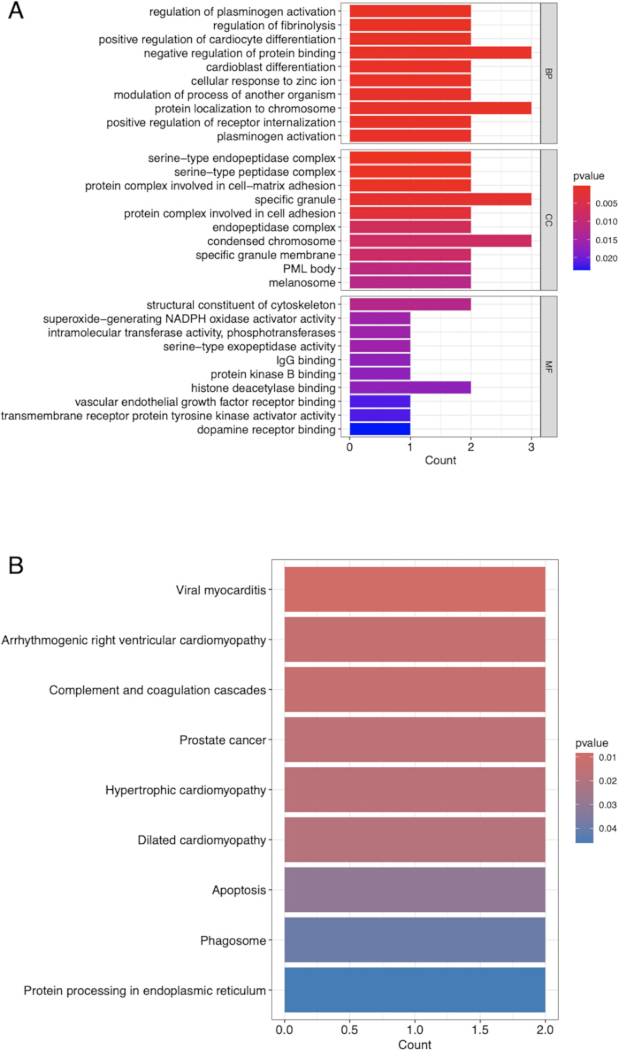
איור 3: ניתוח העשרה פונקציונלית ונתיבים של C-DEGs. גרפי עמודות של ניתוחי העשרה GO (A) ו-KEGG (B). קואורדינטות אנכיות מציינות את תיאור פריטי GO או מסלולי KEGG שונים, וקואורדינטות אופקיות מציינות את מספר ה-C-DEGs המועשרים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
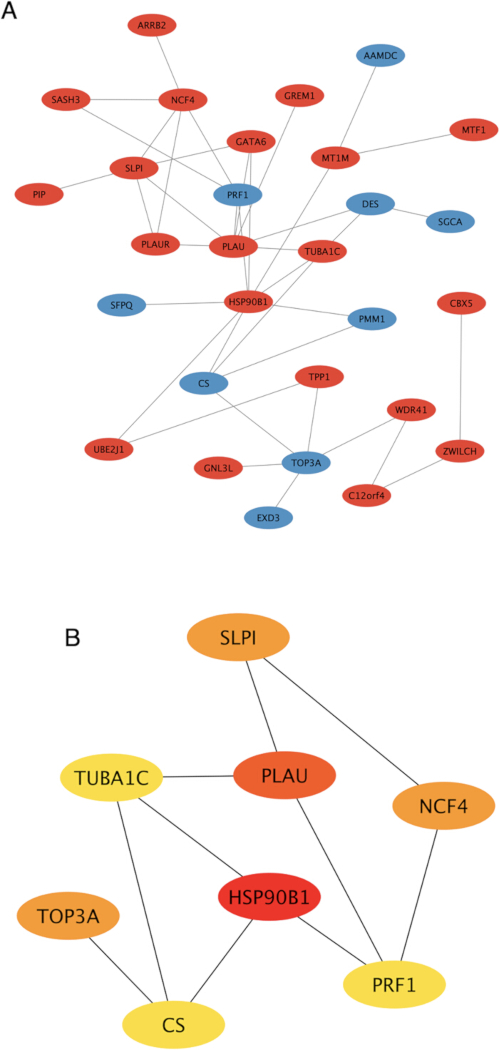
איור 4: סקר גנטי רשת PPI וגן מרכזי של C-DEGs. (א) רשת PPI של C-DEGs. אדום וכחול מייצגים את ה-C-DEGs המוסדרים והמורדים בהתאמה. (B) זוהו שמונה גני hub בקרב C-DEGs. צמתים מייצגים C-DEG, וקשתות מייצגות את האינטראקציה בין C-DEGs. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
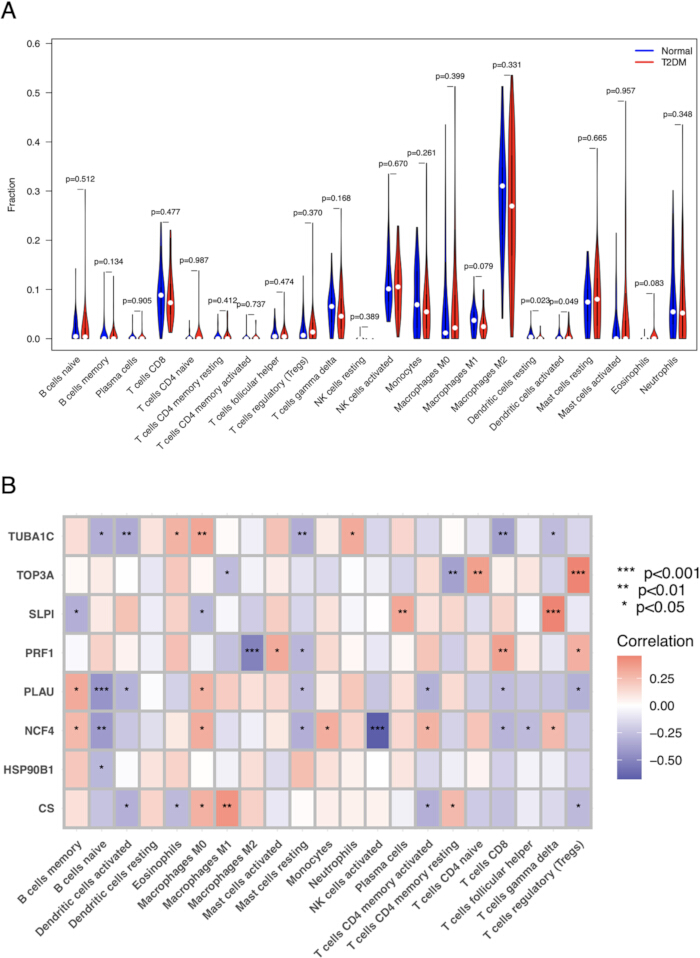
איור 5: ניתוח חדירת תאי חיסון. (א) הבדלים בחדירת 22 סוגי תאי מערכת החיסון בין קבוצת T2DM לקבוצת הביקורת. ציר אופקי: תת-סוגים של תאי חיסון; ציר אנכי: רמת חדירה יחסית לתאי החיסון. (B) מפת חום קורלציה של ביטוי של 8 תאי C-DEG מרכזיים ורמות החדירה של 22 סוגי תאי חיסון. ריבועים אדומים: קורלציה חיובית; ריבועים כחולים: קורלציה שלילית. צבעים כהים יותר מעידים על מתאמים חזקים יותר. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
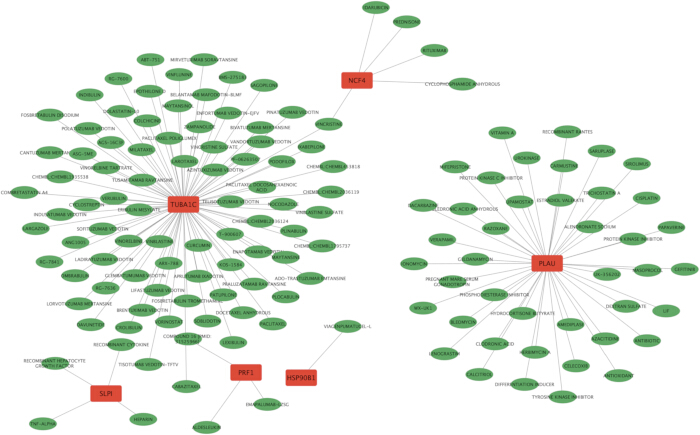
איור 6: רשת יעד תרופות מועמדת לשישה C-DEGs מרכזיים. צמתים אדומים מייצגים את C-DEGs של המרכזים, צמתים ירוקים מייצגים תרופות ממועמדות לממוקדים, והקצוות ביניהם מייצגים זוגות אינטראקציה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
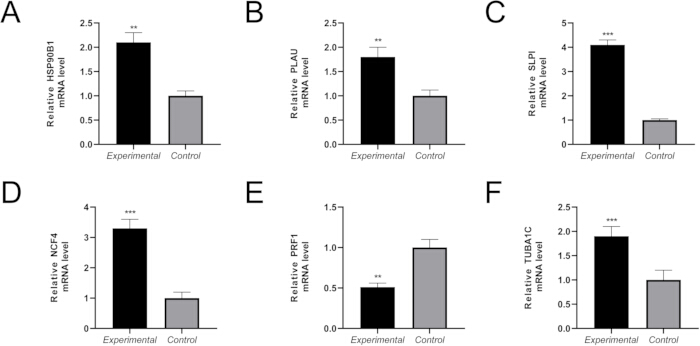
איור 7: אימות ביטוי גנים מרכזיים אצל מטופלים עם T2DM ו-ASCVD באמצעות qRT-PCR. רמות הביטוי של mRNA של HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) ו-TUBA1C (F) זוהו באמצעות qRT-PCR. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
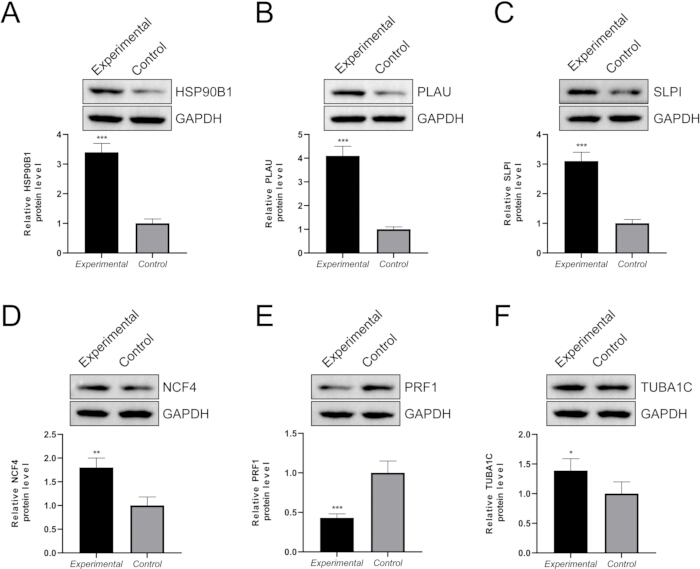
איור 8: אימות ביטוי גנים מרכזיים בחולים עם T2DM ו-ASCVD באמצעות Western Blot. רמות ביטוי החלבונים של HSP90B1 (A), PLAU (B), SLPI (C), NCF4 (D), PRF1 (E) ו-TUBA1C (F) זוהו באמצעות בדיקות Western Blot. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
טבלה משלימה 1. מטריצת ביטוי גנים עבור מאגר הנתונים GSE78721, ששימשה לניתוח Transcriptomic T2DM במחקר זה. אנא לחצו כאן להורדת הקובץ הזה.
טבלה משלימה 2. מטריצת ביטוי גנים למאגר הנתונים GSE12288, ששימשה לניתוח הטרנסקריפטומי של ASCVD במחקר זה. אנא לחצו כאן להורדת הקובץ הזה.
טבלה משלימה 3: ניתוח חדירת תאי חיסון במאגר הנתונים GSE78721. אנא לחצו כאן להורדת הקובץ הזה.
טבלה משלימה 4: אינטראקציות מועמדות בין תרופות למטרה עבור גנים מבוטאים דיפרנציאלית נפוצים ב-hub. אנא לחצו כאן להורדת הקובץ הזה.
קובץ משלים 1: הנתונים הגולמיים מחלק האימות הניסויי שנוצר במחקר זה. אנא לחצו כאן להורדת הקובץ הזה.
דיון
T2DM ו-ASCVD הן מחלות מורכבות, כאשר ראיות מתפתחות מצביעות על קשר משמעותי בין השתיים. עמידות לאינסולין משמשת כגורם מקדים מרכזי להפרעות מטבוליות קרדיווסקולריות שונות, כולל T2DM, אשר תורמות יחד להתפתחות ASCVD ועלולות להשפיע על התחזית שלו 6,7. בנוסף, DM הוא גורם מניע בהתקדמות טרשת עורקים20. אנשים עם סוכרת סוג 2 מתמודדים עם סיכון מוגבר ל-CAD21, אך נותרות שאלות לגבי המנגנונים הבסיסיים של מחלה נלווית. מחקר זה נועד לבחון את הקשר והמנגנונים המקשרים בין שתי המחלות, לצד זיהוי סמנים ביולוגיים פוטנציאליים באמצעות ניתוח ביואינפורמטיקה ואימות ניסוי.
במחקר זה, זוהו סך הכל 32 C-DEGs בין T2DM ל-ASCVD, הכוללים 20 גנים עם ויסות גבוה ו-12 גנים עם ויסות נמוך יותר. ניתוחי העשרה של GO ו-KEGG הראו כי C-DEGs אלו הועשרו בעיקר במסלולים מטבוליים קריטיים הקשורים באופן הדוק ל-CAD ול-T2DM22,23. שמונה C-DEGs מרכזיים (HSP90B1, PLAU, SLPI, TOP3A, NCF4, PRF1, TUBA1C ו-CS) נבדקו בשני המצבים. ראוי לציין כי C-DEGs מרכזיים (TOP3A, SLPI, NCF4, PRF1 ו-PLAU) היו קשורים באופן משמעותי לרמות החדירה לתאי החיסון. HSP90B1 היה מעורב בהתקדמות סרטן24 וייתכן שיש לו גם קשרים ל-T2DM25. הוכח כי PLAU משחק תפקיד במניעת הזדקנות כלי דם מוקדמת הקשורה ל-T2DM26 והוא קריטי בהתקדמות רובד טרשת עורקים, מספק תובנות לסמנים ביולוגיים מוקדמים ומבהיר מנגנונים העומדים בבסיס התקדמות CAD27. הביטוי של SLPI משתפר עם דיספונקציה מטבוליתפרוגרסיבית 28 וזוהה כ-C-DEG הקשור לפגיעה בסבילות לגלוקוז ול-T2DM29. NCF4 קבע קשרים ל-CAD30 ותורם לוויסות פעילות NADPH אוקסידאז ולהפעלת אינפלמזום31. בשל תפקידו המרכזי של PRF1 במעקב וויסות חיסוני32, יש לו פוטנציאל אבחני, ומבדיל בין אוטם שריר הלב ל-CAD33 יציב. יתרה מזאת, PRF1 פועל כשחקן מרכזי בוויסות מערכת החיסון בהתנגדות לאינסולין הקשורה להשמנה34. TUBA1C נקשר גם לסרטן ומקושר לחדירת מערכת החיסון למיקרו-סביבת הגידול35. הוא זוהה כגן רגישות למחלת לב כלילית36. עם זאת, הקשר בין ASCVD ל-T2DM נותר לא נחקר.
ניתוח KEGG חשף את מעורבות הגנים המועמדים הללו במסלולים כמו "מפלסי משלים וקרישה" ו"עיבוד חלבונים ברשתית אנדופלזמית." אימות ניסיוני של גנים מרכזיים במסלולים אלו, במיוחד PLAU (פרוטאז סרין המעורב בפיברינוליזה וקרישה) ו-HSP90B1 (רשתית אנדופלזמית צ'פרון), אישר את חוסר הוויסות שלהם במודל T2DM שלנו. ממצאים אלו ממקמים את המחקר שלנו במסגרת מולקולרית מסוימת, ומרמזים כי חוסר איזון בתגובת הלחץ של הרשתית האנדופלזמית ובמסלולים הטרומבוליטיים עשויים להיות חלק בלתי נפרד מהפתולוגיה הסוכרתית, החורגים מתהליכים דלקתיים מוכרים באופן נרחב.
מחקר נרחב תיעד תגובות חיסוניות לקויות אצל חולי סוכרת37. פעילות לא תקינה של תאי מערכת החיסון משחקת תפקיד מרכזי בהתקדמות T2DM 38,39. ניתוח החדירה החיסונית חשף שינוי משמעותי במחלקת תאי הדנדריט ב-T2DM, המאופיין בשיעור מוגבר של תאי דנדריט מופעלים וירידה בשיעור של תאי דנדריט במנוחה (איור 5A). דבר זה מצביע על מצב של שיפור בהצגת אנטיגן והפעלה חיסונית בסוכרת סוג 2, מה שעלול לתרום לנזק דלקתי כרוני ברקמות המטרה. יתרה מזאת, מתאמים חזקים שנצפו בין גני מרכז ספציפיים (למשל, NCF4 עם תאי NK מופעלים, PRF1 עם מקרופאגים M2) (איור 5B) מצביעים על קשרים מכניים בין ביטוי גנים ברקמות מטבוליות לבין הרכב המיקרוסביבה החיסונית המקומית, ובכך מזהים מטרות חדשות להתערבויות אימונומודולטוריות.
בנוסף, בוצע ניתוח רשת של תרופות-מטרה כדי לחזות מטרות טיפוליות פוטנציאליות, מנגנונים בסיסיים ותרופות ל-T2DM ו-ASCVD. רשת מועמדת זו כללה שישה C-DEGs מרכזיים, 136 תרופות מולקולריות ו-137 קצוות. הניתוח הניב 82, 5, 3, 4, 1 ו-42 תרופות מטרה מועמדות ל-TUBA1C, NCF4, PRF1, SLPI, HSP90B1 ו-PLAU, בהתאמה. רוב התרופות הללו מסווגות כסוכנים אנטי-נאופלסטיים, נוגדי דלקת וסוכנים אנטי-טרומבוטיים. ראוי לציין כי תרופות מסוימות, כולל ריטוקסימאב, פרדניזון, נוגדי חמצון, ורפאמיל, אנטיביוטיקה, קולכיצין והפארין, הראו פונקציות טיפוליות הן ב-T2DM 15,40,41,42,43,44,45,46 והן ב-CAD 15,47,48,49,50, 51,52,53,54,55, המצביעים על ההשפעות הטיפוליות האפשריות שלהם בחולים עם סוכרת סוג 2 ו-CAD. יתרה מזאת, מספר תרופות כמו אלנדרונאט נתרן, קלציטריול, סלקוקסיב, מזופרוקול, מיפפריסטון וכורכומין הוכחו כמפגינות תפקידים טיפוליים ספציפיים בסוכרת סוג 2 (T2DM) 56,57,58,59,60,61,62,63, מה שעשוי להיות גם מועיל ל-ASCVD. נערך גם אימות ביטוי של C-DEGs אלו ב-T2DM וב-ASCVD.
למחקר זה יש מספר מגבלות. ראשית, גודל המדגם הקליני בניסוי האימות לא היה מספיק ויש להרחיב אותו. שנית, יש צורך במחקר ניסיוני נוסף כדי לספק תובנות חשובות לגבי הקשר בין T2DM ל-ASCVD. העבודה העתידית תכלול אימות התוצאות עם קבוצות קליניות גדולות יותר וביצוע מחקרים ניסיוניים מקיפים יותר להבהרת המנגנונים המולקולריים והמסלולים הפתולוגיים המקשרים בין שתי המחלות. בחלק האימות הניסיוני, דגימות מחולות T2DM ו-ASCVD אוחדו ל"קבוצת ניסוי" אחת להשוואה עם ביקורת בריאה. בעוד שעיצוב זה אפשר את אימות השינויים הכלליים בביטוי ב-C-DEGs הליבה שזוהו במצב הנלם, הוא אינו מבחין האם שינויים אלו ספציפיים ל-T2DM, ASCVD, או משותפים לשניהם. מחקרים עתידיים צריכים להשוות קבוצות מובחנות של חולי סוכרת סוג 2, חולי ASCVD ואנשים עם סוכרת סוג 2 (T2DM) הנלחמת ל-ASCVD, כדי להגדיר בצורה מדויקת יותר את התפקידים הספציפיים של גנים אלה במחלות בודדות לעומת המצב הנלם. יתרה מזאת, ניתוח חדירת תאי החיסון בוצע בלעדית על מאגר הנתונים של T2DM (GSE78721) ולא בוצע במקביל עבור מאגר הנתונים של ASCVD (GSE12288). לכן, הקורלציות המדווחות בין C-DEGs במרכז לבין רמות חדירת תאי החיסון (למשל, TOP3A עם Tregs, SLPI עם תאי T גמא דלתא) משקפים רק את תפקידיהם האימונומודולטוריים הפוטנציאליים בהקשר הפתולוגי של T2DM. מגבלה נוספת היא היעדר אימות פונקציונלי לאינטראקציות החזויות בין תרופות למטרה. מחקרים עתידיים צריכים לשלב סימולציות עגינה מולקולרית להערכת זיקת הקשר, יחד עם ניסויים ב-in vivo באמצעות מודלים בעלי חיים להערכת היעילות הטיפולית של תרופות מועמדות אלו.
לסיכום, ניתוח ביואינפורמטיקה משולב זה, בתוספת אימות ניסיוני ראשוני, זיהה מספר גנים מרכזיים ומסלולי מרכז משותפים בין T2DM ל-ASCVD ומציע מועמדים פוטנציאליים לתרופות המיוקדים לגנים אלו. ממצאים אלו מציעים השערות חדשות ומטרות מועמדות לחקירה מכנית וטיפולית נוספת של האינטראקציה המורכבת בין T2DM ל-ASCVD.
גילויים
המחברים מצהירים שאין להם אינטרסים מתחרים.
תודות
המחברים מודים בהכרת תודה על התמיכה הכספית שניתנה על ידי תוכנית קרן המדע הטבעי של נינגשיה (מענק מס' 2023AAC03498) ופרויקט החדשנות במדע וטכנולוגיה ביינצ'ואן (מענק מס' 2024SF005). המחברים גם מודים לכל המשתתפים והחוקרים שתרומתם הפכה את המחקר הזה לאפשרי.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| Anti-GAPDH | Proteintech | 60004-1-Ig | |
| Anti-HSP90B1 | Abcam | ab238126 | |
| Anti-NCF4 | Proteintech | 14648-1-AP | |
| Anti-PLAU | Proteintech | 17968-1-AP | |
| Anti-PRF1 | Abcam | ab256453 | |
| Anti-SLPI | Abcam | ab46763 | |
| Anti-TUBA1C | Abcam | ab222849 | |
| CIBERSORT | Stanford University | https://cibersortx.stanford.edu | |
| clusterProfiler (R package) | Bioconductor | http://www.bioconductor.org/packages/release/bioc/html/clusterProfiler.html | |
| CytoHubba (Cytoscape plugin) | Cytoscape Consortium | https://apps.cytoscape.org | |
| Cytoscape (version 3.9.1) | Cytoscape Consortium | http://cytoscape.org/ | |
| DGIdb (Drug-Gene Interaction Database) | Washington University | http://www.dgidb.org/ | |
| Enhanced chemiluminescent (ECL) substrate | Thermo Fisher Scientific | 34080 | |
| enrichplot (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/enrichplot.html | |
| Gel imaging system | Bio-Rad | ChemiDox XRS | |
| GEO Database (Datasets: GSE78721, GSE12288) | NCBI | https://www.ncbi.nlm.nih.gov/geo/ | |
| ggplot2 (R package) | CRAN | https://ggplot2.tidyverse.org | |
| GOplot (R package) | CRAN | https://cran.r-project.org/web/packages/GOplot/index.html | |
| GraphPad Prism(version 9.1.2) | GraphPad Software | https://www.graphpad.com/scientific-software/prism/ | |
| limma (R package) | Bioconductor | http://bioconductor.org/packages/release/bioc/html/limma.html | |
| loading buffer | Bio-Rad | 1610737 | |
| org.Hs.eg.db (R package) | Bioconductor | https://bioconductor.org/packages/release/data/annotation/html/org.Hs.eg.db.htm | |
| PVDF membrane | Bio-Rad | 1620177 | |
| R software (version 4.0.2) | R Foundation | https://www.r-project.org/ | |
| Real-time PCR system | Bio-Rad | CFX-96 | |
| Reverse Transcription System Kit | Takara | D6110A | |
| scales (R package) | CRAN | https://CRAN.R-project.org/package = scales | |
| SDS-PAGE Gels | Bio-Rad | 4561085 | |
| Secondary antibody | Abcam | ab6721 | |
| STRING databas | STRING Consortium | https://string-db.org/ | |
| SYBR-green PCR Master Mix | Vazyme Biotech | Cat #Q311-02 | |
| tidyverse (R package) | CRAN | https://cran.r-project.org/web/packages/tidyverse/index.html | |
| Trans-Blot transfer system | Bio-Rad | 1704150 | |
| TRIzol reagent | Thermo Fisher Scientific | #1559602 |
מקורות
- Artasensi A, Pedretti A. Type 2 diabetes mellitus: a review of multi-target drugs. Molecules. 2020;25(8):1986.
- Saeedi P, Petersohn I, Salpea P, Malanda B, Karuranga S, Unwin N, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Chatterjee S, Khunti K, Davies MJ. Type 2 diabetes. Lancet. 2017;389(10085):2239-2251.
- Wu J, Yang K, Fan H, Wei M, Xiong Q. Targeting the gut microbiota and its metabolites for type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2023;14:1114424.
- Holman N, Young B, Gadsby R. Current prevalence of Type 1 and Type 2 diabetes in adults and children in the UK. Diabet Med. 2015;32(9):1119-1120.
- Mancusi C, de Simone G. Myocardial mechano-energetic efficiency and insulin resistance in non-diabetic members of the Strong Heart Study cohort. Cardiovasc Diabetol. 2019;18(1):56.
- Hill MA, Yang Y, Zhang L, Sun Z, Jia G, Parrish AR, et al. Insulin resistance, cardiovascular stiffening and cardiovascular disease. Metabolism. 2021;119:154766.
- Trigka M, Dritsas E. Long-term coronary artery disease risk prediction with machine learning models. Bioengineering (Basel). 2023;23(3):1193.
- Nowbar AN, Gitto M, Howard JP, Francis DP, Al-Lamee R. Mortality from ischemic heart disease. Circ Cardiovasc Qual Outcomes. 2019;12(6):005375.
- Mensah GA, Roth GA, Fuster V. The global burden of cardiovascular diseases and risk factors: 2020 and beyond. J Am Coll Cardiol. 2019;74(20):2529-2532.
- Tian R, Liu H, Feng S, Wang H, Wang Y, Wang Y, et al. Gut microbiota dysbiosis in stable coronary artery disease combined with type 2 diabetes mellitus influences cardiovascular prognosis. Nutr Metab Cardiovasc Dis. 2021;31(5):1454-1466.
- Ma CX, Ma XN, Guan CH, Li YD, Mauricio D, Fu SB. Cardiovascular disease in type 2 diabetes mellitus: progress toward personalized management. Cardiovasc Diabetol. 2022;21(1):74.
- Mohammadnia N, Los J, Opstal TSJ, Fiolet ATL, Eikelboom JW, Mosterd A, et al. Colchicine and diabetes in patients with chronic coronary artery disease: insights from the LoDoCo2 randomized controlled trial. Front Cardiovasc Med. 2023;10:1244529.
- Einarson TR, Acs A, Ludwig C, Panton UH. Prevalence of cardiovascular disease in type 2 diabetes: a systematic literature review of scientific evidence from across the world in 2007-2017. Cardiovasc Diabetol. 2018;17(1):83.
- Huang J, Li N, Li Z, Hou XJ, Li ZZ. Low-dose unfractionated heparin with sequential enoxaparin in patients with diabetes mellitus and complex coronary artery disease during elective percutaneous coronary intervention. Chin Med J (Engl). 2018;131(7):764-769.
- Knuuti J, Wijns W, Saraste A, Capodanno D, Barbato E, Funck-Brentano C, et al. 2019 ESC Guidelines for the diagnosis and management of chronic coronary syndromes. Eur Heart J. 2020;41(3):407-477.
- Song S, Yu J. Identification of the shared genes in type 2 diabetes mellitus and osteoarthritis and the role of quercetin. J Cell Mol Med. 2024;28(4):18127.
- Castillo-Velázquez R, Martínez-Morales F, Castañeda-Delgado JE, García-Hernández MH, Herrera-Mayorga V, Paredes-Sánchez FA, et al. Bioinformatic prediction of the molecular links between Alzheimer's disease and diabetes mellitus. PeerJ. 2023;11:14738.
- Zhang J, Zhang FJ, Zhang L, Xian DX, Wang SA, Peng M, et al. Identification of key genes and molecular pathways in type 2 diabetes mellitus and polycystic ovary syndrome via bioinformatics analyses. Eur Rev Med Pharmacol Sci. 2023;27(8):3255-3269.
- Sun H, Ma X, Ma H, Li S, Xia Y, Yao L, et al. High glucose levels accelerate atherosclerosis via NLRP3-IL/MAPK/NF-κB-related inflammation pathways. Biochem Biophys Res Commun. 2024;704:149702.
- Hasbani NR, Westerman KE. Type 2 diabetes modifies the association of CAD genomic risk variants with subclinical atherosclerosis. Circ Genom Precis Med. 2023;16(6):004176.
- Vernon ST, Tang O, Kim T, et al. Metabolic signatures in coronary artery disease: results from the BioHEART-CT study. J Am Heart Assoc. 2021;10(5):019852.
- Colosimo S, Mitra SK, Chaudhury T, Marchesini G. Insulin resistance and metabolic flexibility as drivers of liver and cardiac disease in T2DM. Diabetes Res Clin Pract. 2023;206:111016.
- Huang X, Zhang W, Yang N, Zhang Y, Qin T, Ruan H, et al. Identification of HSP90B1 in pan-cancer hallmarks to aid development of a potential therapeutic target. Mol Cancer. 2024;23(1):19.
- Sims-Robinson C, Zhao S, Hur J, Feldman EL. Central nervous system endoplasmic reticulum stress in a murine model of type 2 diabetes. Diabetologia. 2012;55(8):2276-2284.
- Wan Y, Liu Z, Wu A, Khan AH. Hyperglycemia promotes endothelial cell senescence through AQR/PLAU signaling axis. Int J Mol Sci. 2022;23(5):2677.
- Song C, Qiao Z, Chen L, Ge J, Zhang R, Yuan S, et al. Identification of key genes as early warning signals of acute myocardial infarction based on weighted gene correlation network analysis and dynamic network biomarker algorithm. Front Immunol. 2022;13:879657.
- López-Bermejo A, Ortega FJ, Castro A, Ricart W, Fernández-Real JM. The alarm secretory leukocyte protease inhibitor increases with progressive metabolic dysfunction. Clin Chim Acta. 2011;412(11-12):1122-1126.
- Songtao Y, Fangyu L, Jie C, Li Y. Identification of claudin-2 as a promising biomarker for early diagnosis of pre-diabetes. Front Pharmacol. 2024;15:1370708.
- Wang Y, Liu T, Liu Y, Chen J, Xin B, Wu M, et al. Coronary artery disease associated specific modules and feature genes revealed by integrative methods of WGCNA, MetaDE and machine learning. Gene. 2019;710:122-130.
- Li L, Mao R, Yuan S, Xie Q, Meng J, Gu Y, et al. NCF4 attenuates colorectal cancer progression by modulating inflammasome activation and immune surveillance. 2024;15(1):5170.
- Chen J, Yu L, Zhang S, Chen X. Network analysis-based approach for exploring the potential diagnostic biomarkers of acute myocardial infarction. Front Physiol. 2016;7:615.
- Zhang L, Wang Q, Xie X. Identification of biomarkers related to immune cell infiltration with gene coexpression network in myocardial infarction. Dis Markers. 2021;2021:2227067.
- Revelo XS, Tsai S, Lei H, Luck H, Ghazarian M, Tsui H, et al. Perforin is a novel immune regulator of obesity-related insulin resistance. Diabetes. 2015;64(1):90-103.
- Zou Y, Wang G. Comprehensive multiomic analysis identified TUBA1C as a potential prognostic biological marker of immune-related therapy in pan-cancer. 2022;2022:9493115.
- Yan X, Huang Y, Wu J. Identify cross talk between circadian rhythm and coronary heart disease by multiple correlation analysis. J Comput Biol. 2018;25(12):1312-1327.
- Rubinstein MR, Genaro AM, Wald MR. Differential effect of hyperglycaemia on the immune response in an experimental model of diabetes in BALB/cByJ and C57BL/6J mice: participation of oxidative stress. Clin Exp Immunol. 2013;171(3):319-329.
- Donath MY, Shoelson SE. Type 2 diabetes as an inflammatory disease. Nat Rev Immunol. 2011;11(2):98-107.
- Zhou J, Zhang X, Ji L. Identification of potential biomarkers of type 2 diabetes mellitus-related immune infiltration using weighted gene coexpression network analysis. 2022;2022:9920744.
- Su Z, Ma C, Zhao R, Jiang Y, Cai Y, Yong G, et al. Heterogeneity of circulating CXCR5−PD-1hi Tph cells in patients with type 2 and type 1 diabetes in the Chinese population. 2023;60(6):767-776.
- Banerjee M, Vats P. Reactive metabolites and antioxidant gene polymorphisms in type 2 diabetes mellitus. Redox Biol. 2014;2:170-177.
- Leh HE, Lee LK. Lycopene: a potent antioxidant for the amelioration of type II diabetes mellitus. 2022;27(7):2335.
- Wu X, Gong H, Hu X, Shi P, Cen H, Li C. Effect of verapamil on bone mass, microstructure and mechanical properties in type 2 diabetes mellitus rats. BMC Musculoskelet Disord. 2022;23(1):363.
- Chen YS, Weng SJ, Chang SH. Evaluating the antidiabetic effects of R-verapamil in type 1 and type 2 diabetes mellitus mouse models. PLoS One. 2021;16(8):e0255405.
- Chu L, Su D, Wang H. Association between antibiotic exposure and type 2 diabetes mellitus in middle-aged and older adults. 2023;15(5):1290.
- Guan J, Abudouaini H, Lin K, Yang K. Emerging insights into the role of IL-1 inhibitors and colchicine for inflammation control in type 2 diabetes. Diabetol Metab Syndr. 2024;16(1):140.
- Armitage JD, Montero C, Benner A, Armitage JO, Bociek G. Acute coronary syndromes complicating the first infusion of rituximab. Clin Lymphoma Myeloma. 2008;8(4):253-255.
- Ribichini F, Joner M, Ferrero V, Finn AV, Crimins J, Nakazawa G, et al. Effects of oral prednisone after stenting in a rabbit model of established atherosclerosis. J Am Coll Cardiol. 2007;50(2):176-185.
- Bastani A, Rajabi S, Daliran A, Saadat H, Karimi-Busheri F. Oxidant and antioxidant status in coronary artery disease. Biomed Rep. 2018;9(4):327-332.
- Sotoudeh Anvari M, Mortazavian Babaki M, Boroumand MA, Eslami B, Jalali A, Goodarzynejad H. Relationship between calculated total antioxidant status and atherosclerotic coronary artery disease. Anatol J Cardiol. 2016;16(9):689-695.
- Winniford MD, Jansen DE, Reynolds GA, Apprill P, Black WH, Hillis LD. Cigarette smoking-induced coronary vasoconstriction in atherosclerotic coronary artery disease and prevention by calcium antagonists and nitroglycerin. Am J Cardiol. 1987;59(4):203-207.
- Muhlestein JB. Antibiotic treatment of atherosclerosis. Curr Opin Lipidol. 2003;14(6):605-614.
- Nelson K, Fuster V, Ridker PM. Low-dose colchicine for secondary prevention of coronary artery disease: JACC review topic of the week. J Am Coll Cardiol. 2023;82(7):648-660.
- Fiolet ATL, Nidorf SM, Mosterd A, Cornel JH. Colchicine in stable coronary artery disease. Clin Ther. 2019;41(1):30-40.
- Aimo A, Pascual-Figal DA, Barison A, Cediel G, Vicente ÁH, Saccaro LF, et al. Colchicine for the treatment of coronary artery disease. Trends Cardiovasc Med. 2021;31(8):497-504.
- Ikeda T, Manabe H, Iwata K. Clinical significance of alendronate in postmenopausal type 2 diabetes mellitus. Diabetes Metab. 2004;30(4):355-358.
- Wang Y, Huang M, Xu W, Li F, Ma C, Tang X. Calcitriol-enhanced autophagy in gingival epithelium attenuates periodontal inflammation in rats with type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2022;13:1051374.
- Cheng S, So WY, Zhang D, Cheng Q, Boucher BJ, Leung PS. Calcitriol reduces hepatic triglyceride accumulation and glucose output through Ca2+/CaMKKβ/AMPK activation under insulin-resistant conditions in type 2 diabetes mellitus. Curr Mol Med. 2016;16(8):747-758.
- Tian F, Zhang YJ, Li Y, Xie Y. Celecoxib ameliorates non-alcoholic steatohepatitis in type 2 diabetic rats via suppression of the non-canonical Wnt signaling pathway expression. PLoS One. 2014;9(1):e83819.
- Reed MJ, Meszaros K, Entes LJ, Claypool MD, Pinkett JG, Brignetti D, et al. Effect of masoprocol on carbohydrate and lipid metabolism in a rat model of type II diabetes. Diabetologia. 1999;42(1):102-106.
- Fleseriu M, Biller BMK, Findling JW, Molitch ME, Schteingart DE, Gross C. Mifepristone, a glucocorticoid receptor antagonist, produces clinical and metabolic benefits in patients with Cushing's syndrome. J Clin Endocrinol Metab. 2012;97(6):2039-2049.
- Chuengsamarn S, Rattanamongkolgul S, Luechapudiporn R, Phisalaphong C, Jirawatnotai S. Curcumin extract for prevention of type 2 diabetes. Diabetes Care. 2012;35(11):2121-2127.
- Bozkurt O, Kocaadam-Bozkurt B. Effects of curcumin, a bioactive component of turmeric, on type 2 diabetes mellitus and its complications: an updated review. 2022;13(23):11999-12010.