סקירה זו מגדירה את הציר האימונומטבולי בין המעיים לכבד במחלת כבד סטאטית הקשורה לתפקוד מטבולי לקוי ואת הפנוטיפ הדלקתי-פיברוטי (MASH) שלה, כישלון מחסום חוצה את הפעלת הדלקת, ומעריכה מוצרים טבעיים רב-מטריים ואסטרטגיות שכבתיות ביומרקריות להתערבות מדויקת.
מאמר סקירה
מודולציה של ציר המעיים–כבד ברפואה הסינית המסורתית: מהפרעת מחסום להפעלת אינפלמזום ב-MASLD/MASH
במאמר זה
סיכום
תקציר
מחלת כבד סטאטית הקשורה לתפקוד מטבולי לקוי (MASLD) ופנוטיפ דלקתי-פיברוטי (MASH) שלה מציגים קישור אימונומטבולי בולט. סקירה זו מסנתזת ראיות לאורך ציר המעי-כבד, החל מכשל בחיבור הדוק של האפיתל ומחסום כלי דם במעי (GVB) ועד להגברה של TLR4–MyD88/TRIF–NF-κB והפעלת אינפלמזום NLRP3, ומפרטת את ההיגיון של ספקטרום החשיפה שמקורו במעיים—ליפופוליסכריד (LPS), אתנול אנדוגני, חומצות מרה (BAs), חומצות שומן קצרות שרשרת (SCFAs) וטרימתילמין N-תחמוצת (TMAO). אנו ממקמים את BA-FXR/TGR5, SCFAs-GPR41/43 ו-AMPK/Nrf2 כמודולטורים על-זרם ומורד הזרם שמאפסים את ספי הדלקת ומעניקים יכולת תרופה תלויה בשלבים. בהתבסס על מיפוי צומת למסלול, אנו מסכמים מנגנונים ואותות תרגום עבור ברברין (BBR), קושיוואיו (QSHY), דקוקציה Da-Chai-Hu (DCHD) ופוליסכרידים (למשל, אסטרגלוס, גנודרמה), תוך הדגשת מגבלות פרמקוקינטיות ואתרי חשיפה התומכות בפעולות "מעי-תחילה". אנו מציעים סט ביומרקרים מינימלי של מלווה — LBP/sCD14, פרופילי BA עם דינמיקת FGF19–C4, ו-IL-1β/GSDMD-N — בשילוב עם שערי הדמיה היררכיים (ירידה יחסית ב-MRI-PDFF ≥30%; MRE/ELF) כדי לתמוך בהקלדת תגובות והחלטות ללכת/לא. לבסוף, אנו מדגישים פערים קריטיים (קריאות GVB אנושיות ישירות; מולטי-אומיקס אורך שמחובר לתוצאות קליניות) ומציגים מסלול רב-שלבי מונע ביומרקר (MAMS) לפיתוח אדפטיבי ומדורג של התערבויות רפואה מסורתית רב-מטרתית ב-MASLD/MASH.
מבוא
מחלת כבד סטאטוטי הקשורה לתפקוד מטבולי לקוי (MASLD) ופנוטיפ הדלקתי-פיברוטי שלה, MASH, מוצגים יותר ויותר לא כהפרעות מטבוליות מבודדות אלא כתנאים מערכתיים המונעים על ידי קישור אימונומטבולי לא מוסד. עדויות מתכנסות מציבות את ציר המעי-כבד במרכז אבולוציית המחלה: כאשר שלמות מחסום המעי מתרופפת, דפוסים מולקולריים ואותות מטבוליים הקשורים לפתוגן לומינליים נכנסים בקלות רבה יותר למחזור הדם הפורטלי, ומתחילים ומגבירים תגובות חיסוניות מולדות תוך-כבדיות1. מבחינה מכנית, תפקוד לקוי של המחסום כולל שיקום צומת האפיתל והפרעה של מחסום כלי הדם של המעי (GVB), וביחד מגדילים את העברת הפורטלים של רמזים שמקורם במיקרובים ותזונה, שמורידים את סף ההפעלה של מערכת החיסון המולדת בכבד.
מתחת לאפיתל, מחסום כלי הדם של המעי (GVB) משמש כנקודת ביקורת שנייה עם עקרונות סלקטיביות המקבילים למחסום הדם-מוח. נתונים ניסיוניים ותרגומיים מצביעים על כך שחוסר יציבות ב-GVB יכול להקדים דלקת כבד גלויה, וכי ייצוב המחסום קשור באופן מכני להפחתת עומס דלקתי פורטלי.
אנדוטוקסין במחזור (ליפופוליסכריד, LPS) מראה את הקשר החיובי העקבי ביותר עם התקדמות מ-MASLD ל-MASH ופיברוזיס מתקדמת, ומחזק קשר ברמת האוכלוסייה בין עומס מולקולרי שמקורו במעיים לבין פגיעה בכבד1. מסלול "בישול אוטומטי" הוא גם סיבתי: Klebsiella pneumoniae המייצרת אלכוהול גבוהה קשורה ל-MASLD, והקולוניזציה הניסיונית גורמת לכבד שומני בהיעדר אתנול חיצוני2. מטבוליטים נוספים שמקורם במעיים (למשל, חומצות מרה, SCFAs ו-TMAO) מעצבים את הטון האימונומטבולי של המארח ועשויים לתרום להטרוגניות בין-אישית במסלולי המחלה ובתגובה לטיפול.
ברמות הקולטן והמסלול, קלטי פורטל מרגישים בסינוסיד על ידי TLR4/MD-2, שמסמן דרך MyD88/TRIF→IKK כדי להפעיל את NF-κB, מה שמגביר את TNF-α, IL-1β ו-CCL2 ומניע חדירת לויקוציטים ופגיעה פרנכימלית3. TLR4 מוריד עוד יותר את הפסאודורצפטור BAMBI של TGF-β בתאי כוכב כבדיים, מרגיש אותות פיברוגניים, ומגייס מונוציטים דרך ציר CCL2/CCR2, ובכך מגשר על דלקת לפיברוזיס 4,5. בהמשך הזרם, אינפלמזום NLRP3 דורש פריימינג מתווך NF-κB (אות 1) יחד עם אותות הפעלה מגבישי ROS מיטוכונדריאליים, ATP–P2X7, או גבישי כולסטרול (אות 2) כדי להפעיל קספאז-1, לשחרר IL-1β/IL-18 ולבצע פירופטוזיס; עיכוב פרמקולוגי (למשל, MCC950) יעיל במספר מודלים, אך התועלת ההיסטולוגית אינה אחידה בהקשרים עתירי שומן/כולסטרול, מה שמעיד ש"יכולת התרופות" מוגבלת על ידי הרכב DAMP ותזמון 6,7,8. במקביל, מסלולי BA–FXR/TGR5, SCFA–GPR41/43 ו-AMPK/Nrf2 מווסתים את עמוד השדרה ברמות שונות, מאפסים את ספי הדלקת ומעניקים תגובתיות תלויה בשלב 9,10,11.
מסגרת זו מגדירה צמתים ניתנים לפעולה להתערבות מרובת מטרות. ברברין (BBR) מייצג אסטרטגיה עם חשיפה מערכתית נמוכה המעכבת BSH חיידקי, משנה את מאגר ה-BA, ומפעילה את ציר FXR–FGF15 האיליאלי כדי "לכייל מרחוק" את הקריאות האימונומטבוליות התוך-כבדיות12,13; הקומפלקס היוני BUDCA/HTD1801 הפחית את MRI-PDFF בניסוי אקראי מבוקר שלב 2 (RCT)14. נוסחאות, כגון Qushihuayu (QSHY), הראו תגובות מתואמות בין מיקרוביום-מטבוליט לשיפור באנזימי כבד ובתחליפים של פיברוזיס באקראיות רב-מרכזית15. דקוקטן דה-צ'אי-הו (DCHD) ופוליסכרידים (למשל, אסטרגלוס, גנודרמה) מיפויים לייצוב ה-GVB ולפלסטיות החסינות לרירית/אינפלמזום, בהתאמה 16,17,18. עם זאת, הנוף הראייתי של הרפואה הסינית המסורתית (TCM) ב-MASLD/MASH נותר לא אחיד, ומשתרע על פני מספר קטן של ניסויים אקראיים עם נקודות קצה הטרוגניות ואיכות דיווח משתנה, לצד גוף רחב יותר של מחקרים פרה-קליניים ומייצרי השערות.
בהתאם לכך, מטרה מרכזית של סקירה זו היא לספק סינתזה מובנית וקריטית של ראיות הרפואה הסינית הסינית, להפריד בין נתונים אנושיים חזקים לבין הסקה טרום-קלינית, ולהעריך את עיצוב הניסוי, סיכון להטיה, גדלי השפעה, אותות בטיחות ועמידות התגובה. אנו מדגישים גם מגבלות תרגום מעשיות הבולטות במיוחד להתערבויות ברפואה הסינית הסינית (TCM), כולל תקנון מוצרים, עקביות מאצווה לאצווה, ומסגרות Q-marker, וכן שיקולים רגולטוריים השולטים בספי ראיות לפיתוח ולאימוץ קליני.
על רקע זה, הביקורת עוקבת אחרי שלוש שורות. ראשית, אנו עוקבים אחר הרצף מכשל אפיתליאלי/GVB ועד להפעלת TLR4–NF-κB ו-NLRP3, תוך שילוב ראיות מרכזיות ברמות האדם, החי והתאים. שנית, אנו מסנתזים פרמקולוגיה מערכתית ונתונים קליניים/תרגומיים מייצגים על חומרים טבעיים שמקורם ב-TCM ובחומרים טבעיים אחרים המכוונים לעמוד השדרה של מחסום–קולטן–אינפלמזום והשיח האימונומטבולי שלו, עם יישור מפורש של פרמקוקינטיקה, חשיפה ומנגנון. שלישית, אנו מתארים סמנים ביולוגיים מדידים ושיטות טיפוס תגובה המשתלבות עם מסלולים אלו לשיפור הפרשנות והשחזור החיצוני בקבוצות MASLD/MASH הטרוגניות. על ידי קישור מנגנון להתערבות ולקריאות כמותיות, ציר החיסון בין המעיים לכבד הופך למסגרת תרגום ניתנת לבדיקה שיכולה להנחות טיפול מדורג עתידי (איור 1). סינתזות עדכניות מציבות אסטרטגיות ממוקדות מיקרוביום כציר תרגומי מרכזי ב-MASLD/MASH, הכולל מודולציה מבוססת תזונה, טרום/פרו/סינביוטיקה, השתלת מיקרוביוטה בצואה, וגישות מתפתחות כמו חיידקים מהונדסים ובקטריופאג'ים, ומחזקים את הרלוונטיות הקלינית של התערבויות ממוקדות במעי19.
סקירה ופרספקטיבה
ציר המעי-כבד: מכשל מחסום להפעלת דלקת
חוסר איזון במחסום האפיתליאלי ודליפה פארא-תאית מוגברת
מחסום האפיתל המעי נשמר על ידי שכבת ריר מבוססת MUC2 לומינלית יחד עם קומפלקסים של חיבור אטיקלי (TJ); ZO-1, אוקלודין ומספר קלאודינים מגדירים סלקטיביות פאראתאלית וכך מגבילים מפגשים ישירים בין דפוסים מולקולריים הקשורים למיקרובים לבין קולטני החיסון המולדים באפיתל. במצבי דלקת מטבולית, גורם נמק הגידול α (TNF-α) מפעיל תוכנית תלויה ב-NF-κB שמגבירה את קינאז שרשרת האור של המיוזין (MLCK), ומניעה אנדוציטוזה של אוקלודין וארגון מחדש של אקטומיוזין פריג'נקנלי ליצירת מסלול "דליפה" — אפקט שהודגם הן במודלים in vivo והן במודלים במבחנה 20,21.
תצפיות מכניות אלו תואמות את הפנוטיפים הקליניים. מחקרים בבני אדם מראים בעקביות חדירות מעיים מוגברת ב-MASLD, המקשרת לסטיטוזה ולחומרת דלקת. במחקרים פיזיולוגיים מקושרים לביופסיה, חולים עם מחלת כבד שומני לא-אלכוהולית (כיום במסגרת MASLD) מראים חדירות מוגברת של 51Cr-EDTA יחד עם חריגות ב-TJ והתפתחות יתר של חיידקים במעי הדק, כאשר חדירות קשורה באופן חיובי לדלקת דלקת ודלקת. סקירה שיטתית מאוחרת יותר של מבחני חדירות סוכר כפולה אישרה חדירות גבוהה משמעותית למעי הדק בקרב MASLD לעומת ביקורת בריאה, ובכך חיזקה פגיעת מחסום אפיתל כמאפיין הניתן לשחזור ברמת האוכלוסייה. בהקשר זה, PAMPs לומינליים ואותות מטבוליים נכנסים בקלות רבה יותר למחזור הפורטלי, ומספקים קלטים מעלה הזרם שמכינים אותות TLR4–NF-κB כבדיים ומאפשרים הפעלת אינפלמזום NLRP3.
קישור בין מיקרוביום המעי למחסום בהומאוסטזיס וב-MASLD/MASH
במצבים פיזיולוגיים, המיקרוביום של המעי תורם לשמירת המחסום באמצעות השפעות מתואמות על ריר, חיבורים הדוקים וחסינות רירית. מבנה הקהילה הקומנסלית משפיע על תכונות מחסום הריר, בעוד שאינטראקציות אפיתליאליות-מיקרוביאליות מעצבות עיצוב מחדש של מפגשים הדוקים וחדירות טרנס-אפיתליאלית, ובכך מגבילות את העברת המוצרים המיקרוביאליים תחת הומאוסטזיס 22,23,24. SCFAs המיוצרים בתסיסה מיקרוביאלית פועלים כמטבוליטים איתותיים שיכולים לתמוך בתוכניות מחסום אפיתל ולחסום תגובות שעתוק דלקתיות, ולספק עמידות פונקציונלית נגד הפרעות מחסום23,25.
ב-MASLD/MASH, דיסביוזה ושינוי בתפקוד המיקרוביאלי יכולים לשחוק את תוכניות הייצוב הללו ולהגביר תפקוד לקוי של המחסום. שינוי בחדירות והעברת מוצרים מיקרוביאליים מגדילים את החשיפה לפורטלים ומורידים את הסף להפעלה חיסונית מולדת בכבד, ויוצרים ציר הזנה קדימה מדיסביוזה לכשל מחסום והגברה דלקתית23. דוגמה מכנית ישירה היא ייצור אתנול אנדוגני על ידי Klebsiella pneumoniae שמייצרת אלכוהול גבוהה, שיכולה להניע פנוטיפים של כבד שומני ללא אלכוהול חיצוני, ולקשר בין תפקוד מיקרוביאלי ספציפי לפגיעה מטבולית במארח ולרגישות דלקתית בהמשך2.
תת-סעיף זה מחזק את הקשר בין "מיקרוביוטה → טון מחסום → חשיפה לפורטל" כדי לספק נקודת כניסה מפורשת לפרשנות התערבויות TCM מעיים-קרובות, הטוענות לשיקום מחסום או שינוי מיקרוביוטה.
הפרעה במחסום כלי הדם של המעי וחשיפה מוקדמת לפורטלים
המחסום הווסקולרי של המעי (GVB) ממוקם מתחת לאפיתל ונוצר מתאי אנדותל קפילריים תת-ריריים והקומפלקסים הצמתיים שלהם; באופן פונקציונלי, בדומה למחסום הדם-מוח, הוא מגביל את העברת חיידקים ומקרומולקולות על פני דופן המעי אל מחזור הדם הפורטלי26. מודלים ניסיוניים של דלקת סטאטוהפטיטיס מראים כי הפרעה ב-GVB מקדימה דלקת כבדית, בעוד שחיזוק פרמקולוגי של איתות FXR–β-catenin האנדותליאלי מפחית את עומס הדלקת הפורטלי27.
יחד, ממצאים אלו מפעילים מודל יירוט שכבתי — "מחסום אפיתל → חשיפת GVB → פורטלים" — ומממנים את ה-GVB כצומת פתולוגית מוקדמת ניתנת לפתרון ב-MASLD/MASH28. מבחינה מכנית, שלמות ה-GVB משקפת הדדיות בין מסלולי Wnt/β-catenin ו-FXR; הגברת הוויסות של חלבון שקשור לשפיות פלזמלמיות (PLVAP/PV-1) מסמנת את פתיחת הכניס ומתואמת לדליפה26,27. פגיעה משולבת במחסום האפיתל ובמחסום הווסקולרי מגבירה את העברת האותות הדלקתיים בפורטל היעיל, ובכך מורידה את הסף לחישה והגברה תוך-כבדית27.
שטף של מולקולות שמקורן במעי ונוף החשיפה הסינוסואידלית של הכבד
ברמת האוכלוסייה, אנדוטוקסין במחזור (LPS) הוא האות המולקולרי העקבי ביותר הקשור להתקדמות MASLD. מטא-אנליזה עדכנית מראה שרמות LPS גבוהות יותר ב-MASLD מאשר בביקורת, בקשר עם שלב המחלה וקריאות דלקתיות, ובכך תומכות בשרשרת "כשל מחסום → אנדוטוקסמיה → דלקת כבדית" של ראיות1. אתנול אנדוגני מייצג קלט מרכזי נוסף: Klebsiella pneumoniae המייצר אלכוהול גבוה מועשר בקבוצה סינית של MASLD, והקולוניזציה דרך הפה מספיקה כדי לגרום לכבד שומני בהיעדר אתנול חיצוני, ובכך יוצר קשר סיבתי בין זן מסוים, מטבוליט שלו ופגיעת כבד2. מטבוליטים אחרים שמקורם במעי (למשל, חומצות מרה ו-SCFAs) מווסתים את ספי הדלקת אך כאן מטופלים כרגולטורים קונטקסטואליים ולא כמניעים ראשוניים לחשיפה 29,30,31.
תוכניות הפעלה ואפקטורים של מפל הכבד TLR4–MyD88/TRIF–NF-κB
כאשר קלטי הפורטל מגיעים לסינוסואידים הכבדיים, קומפלקסים TLR4/MD-2 על תאי קופפר, הפטוציטים ותאי אנדותל סינוסואידליים של הכבד מזהים LPS וליגנדים שומנים, מגייסים מתאמי MyD88 או TRIF להפעלת קומפלקס IKK, ומניעים טרנסלוקציה גרעינית של NF-κB, ובכך מעוררים TNF-α, IL-1β ו-CCL2 ומגיעים לשיא בחדירת מונוציטים–מקרופאגים ופגיעה פרנכימלית 3,32.
איתות TLR4 גם מגביר את הפגיעה באמצעות צירים כימוטקטיים ופיברוקניים. מסלול CCL2/CCR2 מגייס מונוציטים שמקורם במח עצם לכבד, וחסימת CCR2 פרמקולוגית או גנטית מפחיתה את חדירת המונוציטים של Ly6C⁺ ומפחית דלקת ופיברוזיס במודלים תזונתייםשל MASH 4. בתאי כוכב כבדיים, TLR4 מפחית את הפסאודורצפטור BAMBI של TGF-β, ומרגיש את התאים ל-TGF-β ומקשר את ההפעלה החיסונית המולדת לתכנות פיברוגני לאורך מסלולים5. בהתאם לכך, בעת הערכת התערבויות TCM הראיות להחלשה של ציר TLR4–NF-κB–CCL2 (ורגישות פיברוגנית במורד הזרם) מטופלות כבעלי ערך מכני גבוה יותר מאשר שינויים מבודדים בסמנים דלקתיים כלליים.
הפעלה דו-אותית של אינפלמזום ופירופטוזיס NLRP3
איתות TLR–NF-κB מהווה את שלב ההכנה (אות 1) ל-NLRP3 ו-pro-IL-1β/IL-18, בעוד ש-ROS מיטוכונדריאלי, הפעלת ATP–P2X7 וכולסטרול חופשי או גבישי פועלים כאותות הפעלה (אות 2) שמרכיבים את קומפלקס NLRP3–ASC–caspase-1, ויוצרים יצירת נקבוביות בוגרות של IL-1β/IL-18 ו-gasdermin-D (GSDMD) לביצוע פירופטוזיס ולדחף התקדמות דלקתית–פיברוטית33. במודלים של MASH וברקמות אנושיות, היפראקטיבציה של NLRP3 עוקבת עם חומרה דלקתית ופיברוטית, וגבישי הכולסטרול מהווים DAMP מרכזי ומקור לאות 2 בדלקת הכבד 6,34.
שלב המחלה וההקשר של המודל הם תכונות קריטיות. בסביבות עתירות שומן וכולסטרול גבוה (HFHC), חוסר ב-Nlrp3 או טיפול ב-MCC950 לא שיפרו את נקודות הקצה ההיסטולוגיות, מה שמעיד כי הרכב DAMP וחלון המינון קובעים את יכולת התרופות של האינפלמזום; בתוך ההיסטוריה הטבעית של MASLD/MASH, NLRP3 נחשב למגבר מפתח ולא כשלב אוניברסלי להגבלת קצב, עם השלכות ישירות להתערבויות שכבתיות ומשולבות 8,35. תלות זו בשלבים מניעה הפרדה מפורשת של (i) טענות למיקוד באינפלמסומים פרה-קליני לבין (ii) ראיות אנושיות שמקשרות קריאות אינפלמסום (למשל, IL-1β/IL-18, GSDMD-N) לנקודות קצה קליניות רלוונטיות.
מסלולי שיחה מודולטוריים
מסלולי BA–FXR/TGR5, SCFA–GPR41/43 ו-AMPK/Nrf2 מווסתים ספי דלקת לאורך המפל הזה. במקום להרחיב את המסלולים הללו בפירוט, אנו שומרים אותם כשכבות מודולטוריות המשפיעות על יכולת התרופות התלויה בשלב של עמוד השדרה – TLR4 – NLRP3 9,27.
כאשר ההגנות האפיתל וכלי הדם נכשלות ברצף, מולקולות שמקורן במעיים מגבירות את האיתות החיסוני הפנימי התוך-כבדי, מה שמגיע לשיא בפירופטוזיס מונע דלקת והתקדמות פיברוטית 6,27,36. הפיגום המכניסטי היעיל הזה מספק את העוגן שעל פיו מוערכות התערבויות הרפואה הסינית הסינית בסעיפים הבאים (ראו טבלה 1).
| צומת ציר (רמה אנטומית) | אירוע מכניסטי מרכזי | תרומה להפעלת אינפלמזום ודלקת | קריאות תרגום | מחקרים ייצוגיים |
| אקולוגיה של מיקרוביוטה במעי | דיסביוזה משנה תוצרים מיקרוביאליים (נטל אנדוטוקסין, ייצור אתנול, טרנספורמציית חומצות מרה, תפוקת SCFA) | מעלה את העומס הדלקתי של הפורטל ומוריד את סף ההפעלה החיסונית המולדת בכבד | מיקרוביום צואה (16S/מטגנומיקה); מטבולום צואה; LBP/sCD14 במחזור | יואן ואח', 20192; טילג ואח', 201637 |
| שכבת הריר וצמתים הדוקים באפיתל | שיפוץ TJ תלוי ב-TNF–NF-κB–MLCK; אנדוציטוזיס אוקלודין; תצורת נקבוביות קלאודין-2 | חדירות פארא-תאית מוגברת מקלה על העברת PAMP (פריימינג של אות 1) | ביטוי ZO-1/אוקלודין; בדיקות חדירות לסוכר כפול; 51Cr-EDTA; LBP/sCD14 | Ye ואחרים, 2006,38; Marchiando ואחרים, 201021 |
| מחסום כלי דם במעי (GVB) | דליפת אנדותל דרך מסלולים תלויים ב-Wnt/β-catenin וב-FXR; הגברת ויסות PLVAP/PV-1 | מגביר את העברת הפורטלים של רמזים דלקתיים מיקרוביאליים ומטבוליים | צביעת PLVAP; סמנים זוגיים של פורטל/דלקת; מדדי דימות קשורים לחשיפה | מוריס ואח', 201927 |
| חשיפה מולקולרית לפורטל | עלייה באנדוטוקסין במחזור; אתנול אנדוגני; שונה בסביבה של BA/SCFA | מחזק את הפריימר של TLR4; מווסת גמישות דלקתית | LPS (תלוי במתודה); LBP; sCD14; פרופיל BA; כימות SCFA | פרהאדי ואח', 200839; יואן ואח', 20192 |
| איתות TLR4 כבדי | TLR4–MyD88/TRIF–NF-κB; ירידה ברגולציה של BAMBI; השראת CCL2 | פריימינג סיגנל 1 של NLRP3; כימוטאקסיס; רגישות תאים סטלטיים ל-TGF-β | מטרות כבדיות TLR4/NF-κB; CCL2; α-SMA; תמלילי קולגן | סקי ואח', 20075; שריפניה ואח', 20153 |
| הפעלת דלקת NLRP3 | פריימינג NF-κB (אות 1) + טריגרים של DAMP (ROS, ATP–P2X7, גבישי כולסטרול) (אות 2) | הפעלה של Caspase-1; שחרור IL-1β/IL-18; הגברה פירופטוטית | IL-1β; IL-18; פעילות קספאז-1; חיתוך GSDMD | Wree ואחרים, 201440; מרידה ואח', 20177 |
| צמתים מטבוליים-חיסוניים | BA–FXR/TGR5; SCFA–GPR41/43; מסלולי AMPK/Nrf2 | איפוס ספי דלקת ויכולת תרופה תלויה בשלב | FGF19–C4; חתימות BA; רמות SCFA; מטרות AMPK/Nrf2 | Neuschwander-Tetri ואח', 20159; קימורה ואח', 201325 |
טבלה 1: נקודות ביקורת מכניות המקשרות בין כשל מחסום להפעלה של דלקת כבד ב-MASLD/MASH.
פרמקולוגיה מערכתית ומנגנונים מולקולריים של התערבויות ב-TCM
מסגרת מערכת-פרמקולוגיה עם אימות מולטי-אומיקס
שימוש בפרמקולוגיה של מערכות/רשת כמחולל השערות—הקרנת קשרי "תרכובת–מטרה–מסלול' על הפתוביולוגיה של MASLD/MASH ואז סגירת המעגל עם מולטי-אומיקס וניסויים במגוון קנה מידה—מציע דרך אפשרית לטענות מכניות שחזרות41.
עם זאת, בסקירה זו, פרמקולוגיה מערכתית מטופלת במפורש כמייצרת השערות ולא כמאשרת. הסקות שמקורן ברשת נחשבות כמעוגנים תרגומית רק כאשר הן מיושרות ל-(i) נתונים קליניים אנושיים, (ii) סבירות מינון–חשיפה, (iii) אתר פעולה אנטומי עקבי, ו-(iv) קריאות מסלול שחזוריות.
סינון והעשרה מבוססי מסדי נתונים בלבד חשופים לשיעורי חיוביות שגויות מנופחים; לכן יש לעבור בדיקות מאמץ מול מגבלות מינון–חשיפה, מיקום וזמן פעולה, וקישור קליני לפני שיקודמו כמודלים הסבריים42.
זרימת עבודה זו כבר תומכת ברמת הפרדיגמה בברברין (BBR). BBR הניתנת דרך הפה מעכבת הידרולאז מלח מרה מיקרוביאלי (BSH), מגבירה חומצות מרה מצומדות לומינליות כמו חומצה טאורוכולית (TCA), מפעילה את ציר FXR–FGF15 האיליאלי, ומפחית את תוכניות קליטת השומנים בכבד (לדוגמה, Cd36), משפרת יחד את הטיפול בשומנים כבדיים ומפחית עומס דלקתי במעי-כבדבמורד הזרם 12,13. במחקרים משולבים של בעלי חיים–אומיקס, מפל BSH→TCA→FXR/FGF15 המוסקן מתיישר עם תגובות השעתוק הכבדיות, ומצביע על מוקד פעולה במעי ולא ליעילות המונעת מחשיפה מערכתית גבוהה 12,43,44.
הראיות ברמת הנוסחה מתגלות. בניסוי אקראי כפול-סמיות, Qushihuayu (QSHY) שיפרה את אנזימי הכבד ואת מדדי הפיברוזיס הפונדקאיטיביים, בליווי שינויים מתואמים במיקרוביום המעי ובפרופילי מטבוליטים, מה שתומך בהיתכנות שלטריאדה 15,45 של "רשת→רב-אומיקס→נקודות קצה קליניות". עם זאת, בין התערבויות הרפואה הסינית ב-MASLD/MASH, מספר ה-RCTים בעלי הכוח המספק נותר מוגבל, נקודות הקצה מבוססות לעיתים קרובות על תחליף, ודיווח על הסתרת הקצאה/עיוורון וטיפול נלווה משתנה, מה שמחייב דירוג מובנה של עוצמת הראיות.
דירוג ראיות וממדי סיכון להטיה. כדי להתמודד עם הטרוגניות ולאפשר סינתזה מובנית, אנו מסווגים ראיות לארבע רמות: רמה 1, ניסויים מבוקרים אקראיים עם נקודות קצה מוגדרות מראש; רמה 2, מחקרים אנושיים מבוקרים לא אקראיים או תצפיתיים; רמה 3, מודלים של בעלי חיים; ורמה 4, הסקה במבחנה, חישוב או רשת46,47. ממדי סיכון ההטיה שנלקחו בחשבון כוללים הסתרת אקראיות והקצאה, עיוורון, היררכיה וריבוי נקודות קצה, משך מעקב, רישום מוקדם, דעיכה, היצמדות ובקרת טיפול רקע. מעבר לסוג המחקר בלבד, חוזק הראיות בסקירה זו מפורש כשילוב של (i) היררכיית עיצוב המחקר, (ii) תוקף פנימי ותחומי סיכון להטיה, (iii) עקביות בין מחקרים עצמאיים, (iv) יישור בין המעורבות המכנית של הצמתים לנקודות קצה קליניות, ו-(v) סבירות פרמקוקינטית של חשיפה למטרה. קוהרנטיות מכנית ללא יישור נקודת קצה אנושית נחשבת ליצירת השערות, בעוד שאותות קליניים חסרי התאמה במסלול מפורשים בזהירות כתופעות לא ספציפיות פוטנציאליות. הערכה אינטגרטיבית זו מיושמת על כל ההתערבויות ברפואה הסינית הסינית הנדונות להלן.
מיפוי התערבות לאורך עמוד השדרה החיסוני בין המעי לכבד
בשכבת המחסום, MASLD/MASH מוקדם כולל הפרעה באפיתל המעי ובמחסום הווסקולרי של המעי (GVB), מה שמעלה את עומס הפורטלים של PAMPs. אגוניזם FXR מייצב את ה-GVB באמצעות איתות Wnt/β-קטנין אנדותליאלי, ובכך מפחית חשיפה לכבד במורד הנהר והפעלה דלקתית — ציר שאומת במודלים של MASHתזונתי 27,48. בתוך התערבויות ברפואה הסינית המסורתית (TCM), פוליסכרידים מגבירים את ביטוי ZO-1/אוקלודין, מפחיתים את החדירות ומפחיתים את זרימת האנדוטוקסינים הפורטליים, ומהווים אסטרטגיית "הסרת חשיפה" במעלה הזרם49. רוב טענות ההגנה על מחסום נשארות ראיות רמה 3 אלא אם כן נתמכות במדדי חדירות אנושיים או פרוקסי פורטל/חשיפה בשילוב עם נקודות קצה קליניות.
מודול TLR4–MyD88–NF-κB משמש כמגבר מתחיל לתוכניות פרודלקתיות וכימיוטקטיות בכבד. בתאי כוכב כבדיים, איתות TLR4 מפחית את הפסאודורצפטור BAMBI של TGF-β, מה שמרגיש את התאים ל-TGF-β ומקל על המעבר מדלקת לפיברוזיס 5,50. בהתאם למיקוד בצומת זה, אסטרגלוס פוליסכרידים (APS) מדכאים TLR4 ופוספו-NF-κB הן במעי והן בכבד, וכן תפוקי TNF-α/IL-6 במורד הזרם, מה שמעיד על עיכוב מקושר לאורך רצף "מחסום→TLR4"49. לצורך הסקה תרגומית, קריאות עקביות למסלול (למשל, החלשת ציר TLR4–NF-κB–CCL2 עם תחליפי פיברוזה) משקללות יותר מאשר שינויים מבודדים בסמנים דלקתיים כלליים 51,52,53.
כפלטפורמת מכה שנייה, אינפלמזום NLRP3 דורש פריימינג תלוי ב-NF-κB (NLRP3 והגברת פרו-IL-1β) יחד עם סימני הפעלה מליפוטוקסיות, ROS או גבישי כולסטרול. בדגימות קליניות ובמודלים מרובים של MASH עכברים, עיכוב או חסימת הפעלתו של NLRP3 מפחית דלקת כבדית ופיברוזיס, אם כי גודל ההשפעה משתנה בין תזונה והקשרים מטבוליים — מה שמעיד על הרכב וזמני DAMP כגורמים ליכולת התרופות 7,40. במחקרים הממוקדים ב-TCM, APS מפחית את איתות NLRP3 ואת הבשלת/שחרור של IL-1β/IL-18, מה שמהווה הגבלה כפולה על פריימינג והפעלה; פוליסכרידים שמקורם בגנודרמה מחדשים את המיקרוביום ומחליש אנדוטוקסמיה בדרגה נמוכה, מה שמפחית בעקיפין את הנטייה להפעיל NLRP349,54. ממצאים אלו הם בעיקר ראיות ברמה 3; הקשר לנקודות קצה או מדדי דימות של פיברוזיס אנושי נשאר דליל ויש לפרש אותו בזהירות. ברמת האינטראקציה של המסלול, BA–FXR/TGR5 ו-SCFA–GPR41/43 מכוונים יחד את הקישור האימונומטבולית; SCFAs מפעילים את הקולטנים שלהם לייצוב אנרגיה וההומאוסטזיס החיסוני, ובכך מווסת את הפגיעות הכבדית25. בשילוב צמתים אלו, קריאות מחסום (ZO-1/אוקלודין, חדירה, LBP/EAA), פלטים פרודלקתיים (TNF-α, IL-6 וצירים של כימוטקסיס נלווים), פלטי אינפלמזום (IL-1β/IL-18, קספאז-1/GSDMD), וקריאות קולטנים גרעיניים/מטבוליות (פרופילי BA עם מטרות FXR/TGR5; SCFAs עם GPR41/43) יכולים להיות רשומים במשותף בין שכבות מולטי-אומיקס כדי לחזק את התוקף החיצוני של הסקה מכנית 25,27,49. בסקירה זו, רישום משותף כזה משמש להערכת קוהרנטיות מכנית, אך יישור נקודות קצה אנושי נותר הגורם המרכזי לחוזק הראיות.
מגבלות פרמקוקינטיות ואתרי חשיפה על הסקה מכנית
בעכברים, הזמינות הביולוגית המוחלטת של ברברין (BBR) היא ~0.36%–0.68%, מוגבלת על ידי ניקוי המעבר הראשון של המעי ופליטת P-gp; התפלגות הרקמות מראה חלוקה כבדית גבוהה למרות רמות פלזמה נמוכות 55,56,57. תכונות אלו מגדירות את BBR כמודולטור מקומי של ציר המעי-כבד, שחשיפת האור שלו מספיקה כדי להפעיל את מפל BSH→BA→FXR/FGF1555,57. אסטרטגיות ניסוח שמעלות משמעותית את החשיפה המערכתית עשויות לשנות את אתר הפעולה המרכזי ואת חלון הבטיחות; לכן, טענות מכניות צריכות לדווח על ריכוזי פורטל ומערכתי לצד יחסי חשיפה-תגובה57.
חשיפה מערכתית נמוכה אינה מונעת מ-BBR להפחית את קלט PAMP הפורטלי דרך ציר מקומי של מיקרוביוטה–חומצה מרה–קולטן גרעיני ולהוריד את הנטייה להפעלה של TLR4/NLRP3 בכבד—ממצאים הנתמכים שוב ושוב על ידי רב-אומיים וניסויים ספציפיים למקטעים 12,13,58. לעומת זאת, פוליסכרידים/אוליגוסכרידים נשארים ברובם לומינליים לאחר הלידה דרך הפה, כאשר היעילות מונעת על ידי תיקון מחסום ותוצרי תסיסה מיקרוביאליים (SCFAs). יעילותן תלויה במינון האפשרי של האור, קינטיקת התסיסה, וחלונות הזמן של חומצות מרה משניות ו-SCFAs; בהתאם לכך, מטבולומיקה של BA/SCFA בסדרת זמן בשילוב עם חלבוני מחסום ומדדי חדירות מספקים קריאות מתאימות לייחוס 25,59,60. כישלון בשילוב סבירות פרמקוקינטית (חשיפה לומינלית, קינטיקה של תסיסה, חלונות מטבוליט זמניים) הוא חולשה חוזרת בייחוס מכניסטי במחקרי הרפדוקציה הסינית ותורם להגבלת השחזוריות.
היררכיית ראיות, סמנים ביולוגיים נלווים ובקרת איכות
אותות תרגום הופיעו ברמות שונות. בניסוי אקראי מבוקר שלב 2 של קומפלקס היוני ברברין–אורסודאוקסיכולאט (HTD1801/BUDCA), ה-MRI-PDFF ירד משמעותית יחד עם שיפורים בפרמטרים מטבוליים, בהתאם לתרגום ברמת האוכלוסייה של מודולציה אימונומטבולית הקשורה ל-BA–FXR14,61. ברמת הנוסחה, RCT כפול-סמיות רב-מרכזי של קושיוואיו (QSHY) הראה שינויים תואמים במיקרוביום המעי ובפרופילי מטבוליטים יחד עם שיפורים באנזימי כבד וב-FIB-4, מה שמדגיש כיצד סמנים ביולוגיים מחזקים את יכולת הפרשנות הסיבתית של קריאות קליניות15. כאשר זמינות, נקודות קצה ברמה 1 (תחליפים מבוססי דימות שומן או פיברוזיס) מקבלות עדיפות על פני תוצאות ביוכימיות בלבד.
יש לשלב ממצאים ניטרליים ושליליים כדי לצמצם דיווח סלקטיבי. בתת-קבוצות של MASLD, ברברין לא הצליח לעלות על בקרת אנזימי כבד או ליפידים, כאשר הטרוגניות נבעה ככל הנראה על ידי פנוטיפ מטבולי בסיסי, מצב חדירה, תרופות נלוות והבדלים במינון/חשיפה — מה שטוען לטובת טיפוס תגובה מוגדר מראש וסטרטיפיקציה מונחית ביומרקר בניסויים עתידיים62. מטא-אנליזה קלינית מעודכנת משנת 2024 מדווחת על שיפורים כלליים באנזימי כבד, שומנים ורגישות לאינסולין עם ברברין, אך מדגישה הטרוגניות במחקר ואת הצורך ב-RCTs איכותיים יותר להגדרת גבולות אוכלוסייה63. בין ההתערבויות, שונות בעיצוב המחקר, בבחירת נקודת סיום חלופית, משך המעקב ובטיפול הרקע מסבכת את ההשוואה בין ניסויים בין-ניסיון. גודל ההשפעה לעיתים קרובות צנוע, ודיווח על תחומי סיכון להטיה אינו עקבי.
לצורך שחזוריות, סמני איכות (Q-markers) ובקרת איכות מקצה לקצה—קישור בסיס החומר וחשיפה ב-vivo לקריאות פרמקודינמיות—הוצעו כאלמנטים יסודיים לסטנדרטיזציה של חקירות רפואה רפונית; בשילוב עם התקדמות בפרמקולוגיה של מערכות/רשתות ובאימות מולטי-אומיקס, מסגרת זו יכולה לשפר את השחזוריות החיצונית ואת התרגום הקליני41. סטנדרטיזציה, עקביות בין אצווה והתאמה רגולטורית הם גורמים קריטיים להרחבה ולהשוואה בין מחקרים שונים, ומטופלים כאן כרכיבים אינטגרליים של אמינות תרגומית ולא שיקולים נלווים. ביחד, גוף הראיות הנוכחי תומך בסבירות ביולוגית להתערבויות מרובות ברפואה הסינית לאורך עמוד השדרה של המחסום–TLR4–NLRP3. עם זאת, רק תת-קבוצה (למשל, נוסחאות מבוססות ברברין וניסויים נבחרים) עומדת בקריטריונים של רמה 1 עם נקודות קצה אנושיות הנתמכות בהדמיה, וגם אלו מוגבלות על ידי גודל אפקט צנוע והטרוגניות. רוב הטענות ברמת המסלול—במיוחד אלו הכוללות ויסות אינפלמסום או ייצוב GVB—נתמכות בעיקר על ידי נתונים פרה-קליניים ברמה 3 ויש לראות בהן כקוהרנטיות מבחינה מכנית אך גם קלינית פרוביטיבית.
התערבויות מייצגות: ראיות תרגומיות לאורך ציר המחסום – TLR4 – NLRP3
ברברין משחזר את תפקוד מחסום המעיים ומחליש את האיתות של NLRP3-inflammasome
ברברין הניתן דרך הפה מציג חשיפה מערכתית נמוכה עם זמינות לומינלית גבוהה: במכרסמים, זמינות ביולוגית אורית מוחלטת היא ~0.36%–0.68%, מוגבלת על ידי ניקוי המעבר הראשון של המעי ופליטת P-גליקופרוטאין55,57. מיקרוביום המעי יכול להוריד את BBR לדיהידרובררין, צורה נספגת יותר, בהתאם למסלול חשיפה של "ראש המעיים והשנייה בכבד". תכונות פרמקוקינטיות וביוטרנספורמציות אלו ממקמות את ה-BBR כדי לווסת תהליכי מעיים-כבד במעלה הזרם המעצבים את ההעברה הדלקתית בכבד במורד הזרם.
בממשק המחסום, BBR מפחית את מיקום האנדוטוקסין/פרו-דלקתי של ZO-1/אוקלודין/קלודינים ומפחית דליפה פארא-תאית, בין היתר באמצעות עיכוב ציר NF-κB–MLCK; דבר זה מפחית בעקיפין את עומס ה-LPS הפורטלי ואת החשיפה הסינוסואידלית של הכבד65. BBR גם מדכא פעילות NF-κB ברירית המעי הגס ובמקרופאגים פרופריים של הלמינה (למינה פרופריה), ומפחית את רמות TNF-α ו-IL-6 ומפחית עוד יותר את מפל TLR4–MyD88–NF-κB66,67. השפעות מחסום אלו וציר TLR4 נתמכות בעיקר על ידי ראיות רמה 3 (בעלי חיים), עם כימות חדירות ישיר מוגבל בקבוצות MASLD אנושיות.
בצומת האינפלמסום, BBR מגביל את הפעלת NLRP3 ואת הפירופטוזיס במודלים של לחץ תזונתי/ליפוטוקסי, בין היתר על ידי הורדת ויסות ציר ROS–TXNIP שמשלב אותות פריימינג והפעלה, ובכך מפחית את הפעלת הקספאז-1 ושחרור IL-1β/IL-18 68. למרות שהם קוהרנטיים מבחינה מכנית, ממצאים אלו עדיין ברובם פרה-קליניים ודורשים אימות מול פיברוזיס אנושי או נקודות הדמיה.
BBR פועל גם דרך ציר האנדוקרין של חומצת המרה (BA): עיכוב הידרולאז של מלח מרה מיקרוביאלי (BSH) מעלה את ה-BAs המצומדים הלומינליים, במיוחד חומצה טאורוכולית, מפעיל את מסלול האיליאלי FXR–FGF15, ומפחית את תוכניות קליטת השומנים בכבד כמו Cd36 — ומקשר בין תכנות מחדש מטבולי להפחתת רגישות לאינפלמזום12. מנגנון BA–FXR זה מספק סבירות ביולוגית להשפעות חוצות קנה מידה אך אינו קובע לבדו יעילות קלינית.
במחקרים קליניים, RCT שלב 2 של קומפלקס הברברין–אורסודאוקסיכולאט היוני (BUDCA/HTD1801) הראה ירידות משמעותיות ב-MRI-PDFF עם יתרונות מטבוליים נלווים לעומת פלצבו, בהתאם לתרגום בקנה מידה חוצה מציר המעי–BA–FXR לקריאות ליפוטוקסיות/דלקתיות כבדיות14. מטה-אנליזות עדכניות מדווחות על גודל השפעה כולל בינוני עבור ALT/AST וסטיאטוזיס כבד, תוך ציון הטרוגניות בין בדיקות אקראיות אקראיות במינון, נוסחה ופרופילי הרשמה — מה שמדגיש את הצורך בסמנים ביולוגיים מלווים ובסטרטיפיקציה מסוג תגובה63,69. שיקולי סיכון להטיה כוללים עיוורון משתנה, משך מעקב מוגבל, והסתמכות על נקודת קצה חלופית. נתוני הבטיחות בדרך כלל חיוביים, אך מעקב ארוך טווח אחר רעילות כבד ופרופיל אינטראקציות בין תרופות לתרופות (למשל, מודולציה של CYP/P-gp) נותרו מאופיינים באופן מלא.
לעיצוב תרגומי, מדדי חדירות LBP ו-MRI-PDFF מספקים סימני ליווי רציונליים. ניסויים עתידיים ייהנו מטיפוס תגובה מוגדר מראש ודיווח גודל אפקט מסודר לפי חדירות בסיסית או מצב הפעלה אינפלמזומטי. בסך הכל, ברברין מהווה אחת ההתערבויות הבודדות שמקורן ב-TCM הנתמכות בראיות מבוססות הדמיה רמה 1, אם כי עם גודל אפקט בינוני, הטרוגניות בין נוסחאות ואישור היסטולוגי מוגבל. טענות מכניות מעבר למודולציה של חומצת מרה/FXR — במיוחד דיכוי אינפלמזום — נשארות ברובן פרה-קליניות ויש לראות בהן סבירות תרגומית אך עדיין לא מבוססות קלינית.
קושיהוואיו (QSHY): ראיות קליניות ורב-מרכזיות לאורך ציר המחסום–חומצת המרה–TLR4
במחקרים פרה-קליניים, QSHY והנוסחה המקורית שלו QHD משקמים צמתים הדוקים של המעי הגס ומגבילים טרנסלוקציה של LPS; פרופיל פוספופרוטאומי קולוניקלי מצביע על איתות MAPK כרגולטור מעלה הזרם, בהתאם לרצף "תיקון מחסום → הפחתת עומס PAMP בפורטל → איתות TLR כבדי מעומעם"70. ברמת ההפטו-תאים, QHD מפעיל את AMPK, משפר את חמצון β התלויה ב-CPT-1A, ובכך מפחית דחף ליפוטוקסי וקלטים דלקתיים משניים71,72. ניתוחי מולטי-אומיקס מראים גם עיצוב מחדש מקביל של מיקרוביום המעי ופרופילי הליפידים/מטבוליטים בסרום, מה שמעיד שההתערבות משתרעת על פני מספר קשרים בממשק המטבולי בין המעי לכבד73. ביחד, ממצאים אלו מהווים בעיקר ראיות מכניות ברמה 3 התומכות בסבירות ביולוגית, אך אינם מגדירים את גודל ההשפעה הקלינית או העמידות בבני אדם.
קלינית, RCT רב-מרכזי, כפול-סמיות, כפול-סמיות ודמה משנת 2024 (n=246) שהשתמש ב-VCTE-LFC ו-ALT כנקודות קצה ראשוניות משותפות, מצא ש-QSHY עדיף על בקרה עבור ALT, AST ו-FIB-4, עם חתימות מיקרוביום ומטבוליטים שעוקבות אחר תגובה קלינית — המקשרות שינויים ב"מיקרוביוטה-מטבוליטים" לקריאות טרנסאמינאז ואאלסטוגרפיה15, אך הפרשנות מוגבלת על ידי הסתמכות על נקודות קצה חלופיות, משך התקופה של 24 שבועות, ופוטנציאל לבלבל שארתי מהתערבויות משותפות באורח החיים. ההשפעות על מספר נקודות הדמיה משניות היו מוגבלות, והטרוגניות בין הנבדקים (כולל חדירות בסיסית ומצב דלקתי) ככל הנראה דיללה את האות, ותמכה בשכבות מבוססות חדירות ודלקת בניסויים הבאים. כאשר זמין, דיווח על הסתרת הקצאה, היצמדות וסטיות מהפרוטוקול הוא קריטי כדי להקשר את הסיכון להטיה עבור גודל ההשפעה הנצפה.
שתי עדיפויות תרגומיות נמצאות בהמשך. ראשית, סמנים ביולוגיים נלווים ושכבות מוגדרות מראש: מטופלים עם LBP בסיסי גבוה, פרופורציות חומצות מרה משניות לא תקינות בצואה, או IL-1β גבוה יותר, תיאורטית נוטים להרוויח יותר מעיכוב מתואם לאורך ציר15 בין המחסום–BA–TLR4. שנית, איכות ומעקב חשיפה: אימצו סימוני Q מבוססי טביעת אצבע (פלבונואידים/חומצות פנוליות מייצגים) ומיפוי אותם לחשיפה בחיים ולהשפעות פרמקודינמיות. בהינתן האופי המבוסס נוסחה של QSHY, עקביות מאצווה לאצווה ואפיון שקוף של שברים פעילים הם תנאי מוקדם להשוואה בין מחקרים ופיתוח רגולטורי74,75. אסטרטגיות משולבות משלימות אנטומית ומכניסטית — רסמטירום מכוון בעיקר לנקודות קצה של טיפול בשומנים כבדיים/פיברוזיס, בעוד שאגוניסטים של קולטני GLP-1 פועלים על משקל ועמידות לאינסולין — מה שהופך את הפיתוח המשותף עם QSHY לדרך רציונלית לכיסוי תגובה רחביותר 76,77. יש להעריך שילובים כאלה באמצעות ניטור בטיחות מוגדר מראש ותיעוד רקע של טיפול מודע לאינטראקציה, במיוחד כאשר תרופות מטבוליות נלוות נפוצות בקרב קבוצות MASLD/MASH. לסיכום, QSHY נתמך על ידי ראיות ברמה 1 לתוצאות ביוכימיות ואלסטוגרפיות, אך עוצמת ההשפעה ועמידותה טרם אושרו בניסויים ארוכים יותר, ממוקדי דימות או מונעי היסטולוגיה. רוב טענות מיפוי הצמתים המכניים נשארות ברמה 3, וההתקדמות הרגולטורית תלויה בסטנדרטיזציה ושכפול בין קבוצות עצמאיות.
דקוקציה של דה-צ'אי-הו (DCHD): שמירה על מחסום כלי הדם של המעי וכיוון מחדש של דיבור צולב בין PPARα/AMPK–NF-κB
DCHD משפר את הליפידים, עמידות לאינסולין והיסטולוגיה של הכבד במודלים של HFD-MASLD, בליווי עיצוב מחדש של מיקרוביום המעי ומטבולום הסרום, בהתאם לפעולה מתואמת במחסום העליון ובקשרים האימונומטבוליים התוך-כבדיים16,78. ב"מחסום השני", מחסום כלי הדם של המעי (GVB), DCHD שומר על שלמות האנדותל תחת עומס תזונתי במודלים של אינטראקציה בין מעי לכבד, מפחית את שטף הפורטל של מולקולות פתוגניות, ומפחית אירועי טרנסלוקציה בכבד, ומדגיש את הפלסטיות של PLVAP/PV-1 והחיבורים האנדותליים; למרות שממצאים אלו נגזרים בהקשר של גרורות בין מעי לכבד, הם מספקים תמיכה מכנית ברמה 3 לייצוב GVB ומעודדים בדיקות בהקשרים הרלוונטיים ל-MASLD עם נקודות קצה הקשורות לחדירות ולאנדוטוקסין. במרכז האיתות הכבדי, השפעות DCHD מתיישרות עם המודולציה בצומת PPARα/AMPK–NF-κB, ומצביעות על השפעה ברמת המערכת על קישור אימונומטבולי79. בסך הכל, הראיות הנוכחיות ל-DCHD נשארות בעיקר פרה-קליניות ומייצרות השערות, עם נתונים אנושיים מוגבלים ברמה 1–2 העוגנים ישירות לתוצאות תואמות המסלול.
מבחינת חוזק ראיות, סקירה שיטתית משנת 2024 מציעה תועלת כוללת של DCHD על טרנסאמינזות, ליפידים וכמה מדדי דימות, תוך הדגשת מגבלות באיכות המחקר והטרוגניות בנקודות הסיום; המחקרים הקליניים הזמינים הם הטרוגניים בעיצובם, לעיתים קרובות מסתמכים על נקודות קצה חלופיות, ומספקים דיווח תוצאות מדורג מוגבל (MRI-PDFF/ELF/MRE), מה שמגביל הסקה לגבי גודל ההשפעה ועמידות80. חששות לסיכון להטיה כוללים הסתרה של עיוורון/הקצאה משתנה, ביקורת על טיפול רקע, ודיווח לא מלא על היצמדות ונזירה, מה שמסבך את ההשוואה בין ניסויים שונים. שלב תרגומי נוסף הוא RCT מועשר במנגנון שמכוון לנקודות קצה של מחסום GVB ואפיתל — לדוגמה, סמני חדירות צואה/סרום – אנדוטוקסין בתוספת PDFF/ELF – ומעשיר באופן פרוספקטיבי משתתפים עם עומס PAMP פורטלי גבוה, כדי להגדיל את הסיכוי לזיהוי תועלת קלינית תואמת למסלול80. בהינתן הסבירות לתרופות מטבוליות נלוות (כגון סטטינים, מטפורמין) בקבוצות MASLD/MASH, יש לשלב תיעוד מודע לאינטראקציה וניטור בטיחות מוגדר מראש בעיצוב הניסוי. ביחד, DCHD נשען כיום בעיקר על נתונים מכניים ברמה 3 ואותות קליניים הטרוגניים. מיקומו כהתערבות מווסת GVB הוא ביולוגי קוהרנטי אך נשאר זמני קלינית עד לאימות נקודת קצה אנושית תואמת עם המסלול.
פוליסכרידים מהרפואה הסינית המסורתית (Astragalus, Ganoderma): חיזוק החיסון הרירי ודיכוי מתואם של TLR4–NF-κB–NLRP3
פוליסכרידים של TCM חשופים בעיקר לאור ולכן ממוקמים היטב לפעול על תוכניות חיסון-מחסום ריריות ושיחת חלב בין מיקרוביוטות למטבוליטים. Astragalus polysaccharides (APS) משפרים הומאוסטזיס חומצות מרה וקישור בין מיקרוביוטה–BA במודלים של HFD-MASLD, משפרים את הסטיטוזיס הכבדי והקריאות הדלקתיות ומצביעים על פעילות על גשר "מחסום–BA–כבד"18,81. פוליסכרידים גנודרמה מגבירים את IgA הפרש, משקמים תאי גביע וחיבורים צמודים, ומגבירים את תמלולי TLR2/4/6 בהקשרים של דיכוי חיסון, בהתאם ל"הפחתת רעש" במעלה הזרם של חיסון–מחסום רירי–טון TLR82. בתוך הכבד, פוליסכרידים גנודרמה מדכאים את האינפלמזום NLRP3 ואת תפוקת IL-1β/IL-18 נמוכה יותר, ותומכים בהפסקת ממסר פירופטוזיס–פיברוזיס17. סינתזה עדכנית קטלג מנגנונים רב-ממדיים שבאמצעותם פוליסכרידים משפרים את MASLD דרך ציר המעי-כבד והציעה תקנים להגדרת Q-marker ומיפוי חשיפה-אפקט83. ביחד, נתונים אלו הם בעיקר ראיות ברמה 3 (פרה-קלינית); מחקרים אנושיים ברמה 1–2 עם נקודות קצה ממוקדות הדמיה או פיברוזיס נותרות מוגבלות.
מספר מגבלות דורשות הבהרה. רוב מחקרי הפוליסכרידים נשארים פרה-קליניים או בשלבים מוקדמים; הטרוגניות בייצור והתפלגויות משקל מולקולרי משתנות מאוד, וריכוזים אפשריים ב-vivo עם עקביות בין אצווה הם צווארי בקבוק חוזרים. הטרוגניות זו מסבכת את השחזוריות, שכן "פוליסכריד" לעיתים מתאר תערובת עם ספקטרום משתנה במשקל מולקולרי, טוהר ופעילות ביולוגית בין ההכנות. ממצאים ניטרליים לגבי הדמיה או נקודות קצה דלקתיות מתרחשים, וסביר להניח שהם מונעים על ידי הבדלים בנוסחה, משך זמן לא אופטימלי ותרופות נלוות. בהתאם לכך, יש לדווח ולשלב תוצאות שליליות או ניטרליות כדי לצמצם הטיית פרסום והערכת יתר של היעילות. לתרגום קליני, סכמת תגובה דומיננטית של מחסום — חדירות מוגברת, LBP גבוה ו-sIgA נמוך בבסיס — בשילוב עם נקודות קצה מדורגות (sIgA/microbiota/SCFAs → LBP/16S rDNA → MRI-PDFF/ELF) מספקת שרשרת ייחוס ניתנת לביקורת, בעוד טביעות אצבע פוליסכרידיות וספקטרום משקל מולקולרי יכולים לשמש כפרימיטיבים לסמן Q המיושרים לחשיפה ולהשפעות פרמקודינמיות84,85. בנוסף, אפיון כימי/מבני (למשל, הרכב מונוסכרידים, פרופיל קישור גליקוזידי, והתפלגות משקל מולקולרי) יכול לחזק את המעקב והתקנון בדרגת רגולציה מעבר לתכולת "פוליסכרידים" גסהשל 86,87. אסטרטגיות משולבות עם אגוניסטים של רזמטירום או קולטני GLP-1 משלימות זו את זו מבחינה מכנית, כאשר הראשונה מדגישה טיפול בשומנים תאי כבד וקריאות פיברוזיס, והשנייה עמידות למשקל ולאינסולין 74,88,89. יש להעריך שילובים כאלה באמצעות ניטור בטיחות מוגדר מראש ותיעוד טיפול רקע קפדני, במיוחד באוכלוסיות המקבלות מספר סוכנים מטבוליים.
בארבע קטגוריות התערבות, הצמתים העוגנים לאורך המחסום – עמוד השדרה TLR4–NLRP3 מובחנים אך מתכנסים בזרימת הראיות – מהפרמקוקינטיקה ואתר הפעולה דרך קריאות מולטי-אומיקס ועד נקודות קצה אוכלוסייה. ברברין פועל באמצעות חשיפה גבוהה למעי ואיתות BA–FXR; QSHY מספק שליטה מתואמת על פני ציר המחסום–חומצת המרה–TLR4; DCHD יוצר הגנה כפולה ב-GVB ובמחסום אפיתליאלי עם כיוונון אימונומטבולי; פוליסכרידים מורידים רעש במעלה הזרם במעגלי חיסון–מחסום–אינפלמזום ריריריים. העלאת סמנים מכניסטיים (חדירה/LBP, sIgA, פרופילי BA, IL-1β/IL-18) יחד עם נקודות קצה מדורגות (MRI-PDFF ו-ELF/MRE כאשר אפשרי) לדרגות מוגדרות מראש יכולה לשפר את הפרשנות ולהפחית הטרוגניות; הטמעת אלה בתוך בקרת איכות מונחית Q וקישור חשיפה-אפקט היא חיונית לשחזוריות ולתרגום ברמה רגולטורית. ניסויים עתידיים צריכים לנעול נקודות קצה היררכיות שמחברות בין מדדי מחסום/GVB ל-MRI-PDFF/ELF/MRE ובאופן מוקדם להעשיר תת-קבוצות "חדירות גבוהה–דלקת" כדי לחדד את מסלול האות לתוצאה. לכן, בעוד שפוליסכרידים מראים קוהרנטיות אימונומודולטורית משכנעת בין קשרי מחסום ודלקתיים, בסיס הראיות הנוכחי נשאר בעיקר פרה-קליני. אימות קליני עם תכשירים סטנדרטיים, סימני Q ניתנים לשחזור ונקודות הדמיה מדורגות נדרש לפני שניתן להסיק מסקנות חד-משמעיות לגבי היעילות.
בין ההתערבויות, עוצמת הראיות אינה אחידה. נוסחאות מבוססות ברברין מחזיקות כיום בנתונים החזקים ביותר הנתמכים בהדמיה אנושית, בעוד ש-QSHY מדגים תמיכה מתפתחת ב-RCT רב-מרכזי בעיקר בנקודות קצה חלופיות. DCHD ופוליסכרידים נשארים קוהרנטיים מבחינה מכנית אך נתמכים בעיקר בראיות קליניות פרה-קליניות או הטרוגניות. א-סימטריה זו מדגישה את חשיבות הדירוג, שכפול וניסוחים סטנדרטיים מובנים לפני שמקודמים טענות תרגומיות רחבות (ראו טבלה 2).
| מחלקת התערבות | צומתים ראשוניים בעמוד השדרה | טענות מכניות מרכזיות | דיווחים על קריאות תרגום במחקרים מקוריים | מצב הראיות האנושיות | רמת הראיות | מחקרים ייצוגיים |
| פורמולציה מבוססת ברברין / ברברין (HTD1801/BUDCA) | Barrier/BA–FXR; TLR4/NLRP3 במורד הדרך (בעיקר פרה-קליני) | עיכוב BSH מיקרוביאלי → ↑BA מצורף-טאורו (למשל, TCA) → הפעלה איליאלית FXR–FGF15 → ↓Cd36 הפטית; הצעת החלשת מחסום/ציר TLR4 והגבלת אינפלמזום | הדמיה: MRI-PDFF; ביוכימי: ALT/AST, פרמטרים מטבוליים; מכניסטי: מטרות אילאל FXR/FGF15, פרופילי BA | RCT מבוקר פלצבו שלב 2 עם הפחתת MRI-PDFF (בנוסף לתוצאות מטבוליות) | רמה 1–2 לנקודות קצה של הדמיה/ביוכימיות; רמה 3 לטענות אינפלמסום | הריסון, et.al, 202114; יום ראשון, et.al, 2017,12; נג'אטי, et.al, 202262; ניה, et.al, 202463 |
| קושיחואיו (QSHY) / אב קדמון QHD | מחסום; כיוון מטבולי הקשור ל-BA/AMPK; ציר TLR4 (מכניסטי) | שיקום TJ והפחתת העברת LPS; ויסות על-זרם הקשור ל-MAPK (פרה-קליני); תכנות מחדש של FAO ומטבוליזם המקושר בין AMPK/CPT-1A; שיקום מיקרוביוטה–ליפידום | אדם: ALT/AST, FIB-4; VCTE-LFC (שותפות ראשית עם ALT); תגובת מעקב אחר חתימות מיקרוביום/מטבוליטים; פרה-קליני: קריאות AMPK/CPT-1A/FAO; שינויים במיקרוביום + ליפידומיקה | RCT כפול-סמיות, דמה כפולה רב-מרכזית, עם נקודות קצה ראשוניות משותפות (VCTE-LFC + ALT), תחליפים לפיברוזיס משניים | רמה 1 לנקודות קצה קליניות חלופיות + קשר אומיקס; רמה 3 לתביעות צומת מכניסטיות | ליו, et.al, 202415; פנג, et.al, 201371; ראשון, et.al, 202272 |
| דה-צ'אי-הו דקוקשן (DCHD) | GVB; מחסום במעלה הזרם; PPAR/AMPK–NF-κB (פרה-קליני) | שומר על שלמות GVB (קישור PLVAP/PV-1) תחת היפרתזונה; מפחית זרם פורטלים/אירועי טרנסלוקציה; משפר את הפנוטיפ המטבולי והדלקתי במודלים של NAFLD | פרה-קליני: היסטולוגיה, מדדים של ליפידים/IR; מיקרוביום המעי + מטבולומיקה של הסרום; סימני שלמות GVB (PLVAP/PV-1) | ראיות קליניות בעיקר ממחקרים הטרוגניים שסוכמו בסקירה שיטתית; נקודות קצה ברמות הדמיה מוגבלות | בעיקר רמה 3; אותות קליניים הטרוגניים | קוי, et.al, 202016; Wang, et.al, 202378; מו, et.al, 202480 |
| פוליסכרידים TCM (Astragalus, Ganoderma) | חסינות/מחסום רירית; TLR4–NF-κB; NLRP3 (בעיקר פרה-קליני) | חיזוק מחסום (חלבוני TJ), מודולציה חיסונית רירית (sIgA); הפחתת אנדוטוקסיה; דווח על ריסון דלקתי; קישור מיקרוביוטה/BA במודלים של NAFLD | פרה-קליני: חלבוני TJ (ZO-1/אוקלודין), sIgA, ציטוקינים; הרכב המיקרוביום במעיים; הומאוסטזיס BA (כולל קריאות ממוקדות מסלולי BA); כבד: סמנים דלקתיים (IL-1β/IL-18/NLRP3 במודלים של פציעות) | ניסויים חזקים הממוקדים בהדמיה אנושית/פיברוזיס מוגבלים; ראיות בעיקר מכניות/פרה-קליניות | בעיקר רמה 3 | ג'נג, et.al, 202418; Ying, et.al, 202082; ג'ונג, et.al, 202249 |
טבלה 2: התערבויות מייצגות שממופו לציר המחסום–TLR4–NLRP3 ודיווחו על קריאות תרגום.
סמנים ביולוגיים וטיפוס תגובה המעוגנים לעמוד השדרה החיסוני בין המעי לכבד
פאנל סמנים ביולוגיים מינימליים והגדרות סף
הפעלת עמוד השדרה "barrier–TLR4–NLRP3" דורשת פאנל מינימלי, הניתן לחזרה על עצמו ב-invivo, שעוקב עם הדמיה ונקודות קצה קליניות. לגבי עומס מולקולרי שמקורו במעיים, סקירה שיטתית ומטה-אנליזה מצביעות על כך שליפופוליסכריד במעגל עולה על פני הספקטרום מ-MASLD ועד MASH ופיברוזיס מתקדם, מה שתומך בשימוש בו לשכבות וכמדד חשיפה פרוקסימלי 1,90,91. מכיוון שכימות LPS הוא מתודולוגי הטרוגני, מחקרים משתמשים בדרך כלל בחלבון הקשור ל-LPS וב-CD14 המסיס (sCD14) כתחליפים; שניהם קשורים לפעילות LPS אך חסרי ספציפיות ורגישים לתנודות לאחר הארוחה, וטוענים לדיגימה בסיסית צום משולבת ודגימה לאחר הארוחה סטנדרטית עם דיווח מפורש על תזמון והסתייגויות פרשניות 1,92. יתרה מזאת, גיוון מבני בשומנים A משנה את ספי ההפעלה של TLR4, ולכן השוואות בין מחקרים צריכות לציין את מקור ה-LPS ואת פורמט הבדיקה כדי למנוע הטיה של "אותו שם, מולקולה שונה"93.
בהתאם לכך, בניסויים קליניים ממוקדי TCM, בחירת סמנים ביולוגיים צריכה להעדיף שחזוריות הבדיקה והשוואתיות בין-קבוצה על פני שלמות תיאורטית, ושקיפות מתודולוגית צריכה ללוות את כל קריאות החשיפה.
פרופילינג חומצות מרה מספק חלון לוויסות הלקוי של BA–FXR/TGR5. ב-MASH, סכומי BA בצואה ופלזמה ומינים מסוימים (למשל, חומצה כולית, חומצה כנודאוקסיכולית) גבוהים לעיתים קרובות ומקושרים לשלב הפיברוזיס ולעמידות לאינסולין, ותומכים בתת-סוג94 של "BA–FXR דומיננטי". בפלזמה, 7α-hydroxy-4-cholesten-3-one (C4) משקף סינתזת BA ובדרך כלל עוקב הפוך אחרי משוב איאלי FXR–FGF19; קריאות שמשלבות FGF19 עם C4 מסייעות בפתרון מצב דינמי של FXR ויכולות לשמש להערכת תגובתיות להתערבויות ממוקדות BA–FXR 95,96,97. עבור חומצות שומן קצרות שרשרת (SCFAs), הקשרים בין סטיטוזיס לפיברוזיס תלויים בכיוון בתזונה ובאקולוגיה; שילוב SCFAs של צואה או פלזמה עם קיבולת תפקודית מטאגנומית (מסלולי ביוסינתזה של SCFA) וקריאות קולטנים (GPR41/43) משפר את התוקףהחיצוני 98.
מכיוון שמדידות BA ו-SCFA רגישות לצריכה התזונתית, אקולוגיית מיקרוביום ושונות בפלטפורמת LC-MS, פרוטוקולי דגימה מוגדרים מראש וצינורות אנליטיים הם חיוניים אם סמנים אלו אמורים לשמש כסמנים נלווים בניסויים ב-TCM (סימנים נלווים).
מדדים ישירים של "חדירה" נותרו לא ברורים. זונולין אנושי מתאים לפרה-הפטוגלובין-2, אך ELISA הנפוצים חסרי ספציפיות ועלולים להגיב עם פרופרדין או חברים אחרים במשפחת זונולין, מה שמניב תוצאות לא יציבות בין קבוצות שונות; זונולין מטופל בצורה הטובה ביותר כחקר ומאומת באמצעות בדיקות חדירות פונקציונלית או חתימות שעתוק מחסום כדי למזער הנחיות חיוביות שגויות 99,100. הראיות המולקולריות להעברת חיידקים (16S rDNA במעגל או כבד) הן ביומסה נמוכה מטבעה ורגישות לזיהום מגובה ובאצוות; בקרות שליליות קפדניות וצינורות דה-קונטמינציה הם חובה, ויש לפרש סיבתיות להיות זהיר גם כאשר מדווחים הבדלים ברקמת כבד מטבולית/שמנה101.
הדמיה ספית וקריאות פיברוזיס מספקות שערי "ללכת/לא-זז" סטנדרטיים. ירידה יחסית של ≥30% ב-MRI-PDFF מתואמת עם תגובה היסטולוגית (שיפור NAS/רזולוציה של MASH) ומתאימה לקבלת החלטות ביניים של 4–12 שבועות ותכנון גודל מדגם102,103. ספי פיברוזיס כבד משופרים (ELF) של 9.8 ו-11.3 תומכים בטריגרים ארוכי טווח של סטרטיפיקציה ופיקוח סיכון. נוקשות כבד באלסטוגרפיה בתהודה מגנטית (MRE) סביב 3.3 קילופסקל, כאשר משולבת עם FIB-4 ≥ 1.6 ככלל MEFIB, מעשירה את ≥F2 פיברוזיס בביטחון גבוה בין קבוצות שונות, מה שמאפשר זיהוי מהיר של אוכלוסיות בסיכון גבוה ומנחה את ההרשמהל-104. בהתפתחות הרפואה הסינית הסינית (TCM), חיבור סמנים חיסוניים פרוקסימליים (כגון LBP, IL-1β) עם ספי הדמיה מדורגים מספק מסגרת היררכית שמפחיתה את התלות בפונדקאים ביוכימיים בלבד.
טיפוס תגובה המבוסס על עמוד השדרה החיסוני
באמצעות הרצף "אפיתליום/GVB → LPS–TLR4–NF-κB → NLRP3" כבסיס הארגון, ניתן לחלק את MASLD/MASH באופן תפעולי לשלושה תת-סוגים הניתנים להתערבות. פנוטיפ דומיננטי של מחסום מאופיין בצום מוגבר או ב-LBP/sCD14 סטנדרטי לאחר האוכל, מעבר ליחס גבוה יותר בין חומצות מרה ראשוניות/משניות, וחוסר איזון חיסוני רירי. ההדמיה בדרך כלל מראה MRI-PDFF גבוה כאשר MRE/ELF עדיין נמצאים בטווחי סיכון נמוכים עד בינוניים, מה שמעדיף אסטרטגיות קו ראשון שמחזקות את שלמות האפיתל וה-GVB, מעצבות מחדש את המיקרוביום ומנרמל את מאגר חומצות המרה; התגובה המוקדמת נמדדת בצורה הטובה ביותר על ידי ירידות משולבות ב-LBP/sCD14 יחד עם הפחתה של PDFFב-1,92.
תת-סוג זה רלוונטי במיוחד לאסטרטגיות הרפואה הסינית המדגישות ייצוב מחסום ועיצוב מחדש של מיקרוביוטות (למשל, פוליסכרידים או נוסחאות דמויות QSHY), ומספק בסיס רציונלי להעשרה בניסויים ממוקדי מחסום. פנוטיפ דומיננטי אינפלמזום כולל רמות IL-1β גבוהות בדם או בכבד, חתימות חיוביות של NLRP3 ו-GSDMD-N ברמת התמלול/חלבון, והחמרה תואמת בקריאות הפיברוזה. רקמות אנושיות ומודלים של בעלי חיים מראים כי GSDMD-N עולה עם פעילות מחלותית ופיברוזיס, וכי עיכוב סלקטיבי של NLRP3 מפחית דלקת כבדית ופיברוזיס תוך השפעה מוגבלת על סטאטוזיס—מה שמדגיש סיכון לאי-התאמה שבו הפחתת שומן אינה שווה לשיפור דלקתי/פיברוטי. בתת-סוג זה, שילוב חסימת NLRP3–caspase-1–IL-1β עם תכנות מחדש מטבולי מונחה AMPK/Nrf2 עשוי להגדיל את ההסתברות לתגובה 7,36.
בהקשרים של רפואה סינית מסורתית, פנוטיפ זה מתיישר באופן מכני עם סוכנים שדווחו כמווסתים את איתות הדלקת (למשל, BBR, APS) ומדגיש את הסיכון שנקודות קצה "שומן בלבד" עלולות להיכשל בלתפוס תועלת תואמת עם המסלול. פנוטיפ BA–FXR-דיסרוויסט מצוין על ידי הרכב BA לא תקין של צואה/פלזמה ודינמיקת FGF19/C4 מופרעת, מה שמעיד על מצב לא פיזיולוגי במעגל BA–FXR/TGR5 בין המעי-כבד. מעבר למדדי מחסום/מיקרוביוטה, תת-סוג זה דורש הערכה מפורשת של תגובתיות ושולי בטיחות FXR/TGR5; יש לשפוט את היעילות באמצעות יישור מחדש פיזיולוגי של פרופילי BA יחד עם שיפורים תואמים ב-PDFF וב-MRE94,95. עבור התערבויות TCM המשפיעות על בריכות חומצות מרה או פעילות FXR, תת-סוג זה מציע אסטרטגיית העשרה ביולוגית קוהרנטית, בתנאי שמעקבים אחרי שולי בטיחות והשפעות חומצות מרה מחוץ למטרה.
יישור שכבתי ומעקב אורך
כדי לתרגם את המנגנון → סמנים ביולוגיים → תוצאות ברמה הפרטנית, מומלץ מסגרת בת שלוש נקודות זמן: תוצאה → ביניים (4–12 שבועות) → (≥24–48 שבועות). בדיקת בסיס צריכה לכלול את הפאנל המינימלי (LBP/sCD14, פרופיל BA, וכאשר זה מידע חשוב—SCFAs ו-16S rDNA מנוקה בקפדנות), הדמיה עם MRI-PDFF/MRE, וסיווג סיכונים (למשל, MEFIB), עם נקודות קצה משניות משותפות ותת-סוגים ספציפיות מראש שמקורן בסכימה105 בשלוש מחלקות. בינתיים, MRI-PDFF פועל כאות ללכת/לא-כניסה: ירידה יחסית של ≥30% בתוך 4–12 שבועות, מלווה בירידות סינכרוניות ב-LBP/sCD14, מצביעה על כך שזרוע המחסום הופעלה ביעילות. אם PDFF יורד אך IL-1β/GSDMD-N או ELF/MRE אינם משתפרים, הדפוס מצביע על חוסר התאמה דומיננטי באינפלמסום וצריך לעורר תוספת או מעבר לאסטרטגיות מונחות NLRP3–caspase-1102,103.
חלון התוצאות נותן עדיפות ל-MRE/ELF ולנקודות קצה קליניות לאורך ≥24–48 שבועות כדי ללכוד את דינמיקת הפיברוזיס; ספי ELF של 9.8/11.3 ושער MRE סביב 3.3 kPa—בשילוב עם FIB-4 ≥1.6 בכלל MEFIB—תומכים בשיקום סיכונים ובהכרעת אירועים104. לתמיכה בהיתכנות הסטרטיפיקציה הסיכונית המעוגנת במולטי-אומיקס, מחקר מיקרוביום-מטבולום צואתי לאחרונה בשחמת זיהה חתימות מיקרוביאליות ומטבוליות התלויות בסיבוכים עם ביצועים אבחנתיים טובים וקורלציות עם סמנים קליניים, וממחיש כיצד אומיקסים שמקורם במעי יכולים להיות משולבים לתוצאות קליניות משמעותיות78. לבדיקות ביומסה נמוכות במהותו, יש לחשוף בקרות שליליות וצינורות דה-קונטמינציה; זונולין צריך להישאר חקרני ולעבור אימות צולב עם בדיקות חדירות פונקציונליות או חתימות מחסום אפיתל כדי למנוע הנחיות חיוביות שגויות101.
במסגרת זו, לוח הביומרקרים המינימלי וספי ההדמיה המדורגים מהווים בסיס למערכת קוהרנטית לסיפוג תגובה ומעקב. הקטגוריות הדומיננטיות במחסום, דומיננטיות באינפלמזומים, ו-BA–FXR-discontrolled מפות לאסטרטגיות מעשיות—הגנה אפיתליאלית/GVB עם שיפוץ מיקרוביוטה–BA; עיכוב NLRP3–caspase-1 עם כיוונון מטבולי מחדש; ומודולציית FXR/TGR5, בהתאמה—עם אימות באמצעות שינויים מתואמים ב-LBP/sCD14, פרופילי BA, IL-1β/GSDMD-N, ו-MRI-PDFF/MRE/ELF. בדרך זו, עמוד השדרה החיסוני הופך לקריטריונים ניתנים לבדיקה של "מי מרוויח" שמנחים את כללי ההפסקה הזמניים, העשרה ומעקב בניסויים 1,103. על ידי קישור מפורש בין תת-סוג, מחלקת התערבות ונקודות קצה היררכיות, עמוד השדרה החיסוני מומר לקריטריונים ניתנים לבדיקה של "מי מרוויח" שיכולים לשפר את יעילות הניסוי, להפחית הטרוגניות ולחזק את הייחוס הסיבתי במחקרי הרפואה הסינית הסיבתית.
דוגמאות להמחשה, ברמת פרוטוקול, לעיצובים מונחי ביומרקר
כדי לשפר את היישום של מושגי הביומרקר והעיצוב האדפטיבי המוצעים, אנו מספקים שני דוגמאות ברמת פרוטוקול המעוגנים בעיצובי ניסוי שפורסמו ובספי הדמיה/סמנים מאומתים, במקום בחירות פרמטרים היפותטיות. המטרה היא להראות כיצד ניתן להפעיל תת-סוגים מכניים באמצעות נקודות קצה מוגדרות מראש, כללי החלטה ביניים ובדיקות שניתן לשחזר.
דוגמה 1 עובדת: ניסוי נוסחה מועשרת במחסום (QSHY) עם שער הדמיה וקריאת פיברוזה.
יישום מעשי של סכמת הדומיננטיות של המחסום יכול לנצל את עיצוב הניסוי האקראי הרב-מרכזי, כפול-סמיות, כפול-סמיות, של Qushi Huayu (QSHY) באוכלוסיות NAFLD, שהשתמש בנקודות קצה ראשוניות משותפות המיואמות לתכולת שומן הכבד באמצעות אלסטוגרפיה חולפת מבוקרת רטט ו-ALT ב-24 שבועות. פרוטוקול מועשר יכול להגדיר מראש קריטריוני כניסה לעיוורון בסיסי באמצעות MRI-PDFF (למשל, ≥10%) וחשיפה מוגברת הקשורה למחסום (LBP ו/או sCD14 מעל השלישייה/רבע העליון של הקבוצה שנבדקה), תוך שמירה על אותו מבנה עיוורון והשוואה לצורך היתכנות ופרשנות15. החלטה ביניים בשבוע 12 תשתמש ב-MRI-PDFF כשער: ירידה יחסית של ≥30% תוגדר כאות תגובה מוקדמת המבוססת על ראיות מטא-אנליטיות המקשרות סף זה לתגובה היסטולוגית ולרזולוציית NASH102 ולסיכויים של רגרסיית פיברוזיס103. המשתתפים המשיכו לשבוע 24–48 עם עדיפות לתוצאות ממוקדות פיברוזיס (ELF ו/או MRE), תוך שימוש בשכבות ELF פרוגנוסטיות מבוססות (למשל, <9.8 לעומת ≥11.3) לסיווג מחדש של סיכון ופרשנות תוצאות104. כאשר נדרשת העשרת פיברוזיס, ניתן להגדיר מראש את כלל ה-MEFIB (MRE ≥3.3 kPa בתוספת FIB-4 ≥1.6) בתחילת הדרך או כשכבת זכאות או כתת-קבוצה מרכזית לחיזוק הכוח להסקה105 הרלוונטית לפיברוזיס. סמנים ביולוגיים מלווים (LBP/sCD14, IL-1β/GSDMD-N) ייאספו בתחילת הדרך ובשבוע ה-12 כדי לבדוק את מעורבות המסלול ולתמוך בפרשנות מכנית של מסלולים ביוכימיים דיסוננטיים.
דוגמה מטופלת 2: ניסוי התערבות מועשר ב-BA–FXR (נוסחה מבוססת ברברין) עם שער PDFF ונקודות קצה מטבוליות.
יישום של BA–FXR דיסרוויסט יכול להיות מעוגן בניסוי מבוקר פלצבו שלב 2 של ברברין אורסודאוקסיולאט (HTD1801/BUDCA), שהראה הפחתה משמעותית ב-MRI-PDFF לצד שיפורים מטבוליים ב-NASH משוער עם סוכרת סוג 214. פרוטוקול שניתן למימוש יגדיר מראש העשרת ציר BA באמצעות פרופילי BA בסיסיים ו/או דינמיקת FGF19–C4 (כפי שמתואר בכתב היד), תוך שמירה על MRI-PDFF כנקודת הקצה הראשית של הדמיה המוקדמת. שער ביניים של 12–18 שבועות יכול שוב לאמץ את סף הירידה היחסי של PDFF ב-≥30% כדי לתמוך בהחלטות ללכת/אי-ללכת ותכנון גודל מדגם, בהתאם לראיות שלב מוקדם102. מכיוון שאותות קליניים עם מוצרי ברברין מראים הטרוגניות—כולל מחקרים אקראיים המדווחים על השפעות ניטרליות על אנזימי כבד ומדדים מטבוליים בתת-קבוצות של NAFLD—פרוטוקולים צריכים להגדיר מראש טיפוס תגובה וניתוחי הטרוגניות מתוכננים, במקום להתייחס לאותות אפס כהפתעות לאחר מכן62. מטא-אנליזה עדכנית מדגישה גם שונות בין ניסויי ברברין בנוסחה, במינון ובפרופיל המטופלים, ותומכת בצורך בסמנים ביולוגיים מלווים ובפרשנות שכבתית63. ניטור בטיחות צריך להיות מוגדר באופן פרוספקטיבי תוך דגש מיוחד על סבילות מערכת העיכול ופוטנציאל האינטראקציה בין תרופות לתרופות בקבוצות שטופלו מטבולית, בהתאם לדפוסי האירועים השליליים שדווחו בניסוי HTD180114.
תבנית מימוש: MAMS מונחה ביומרקר מפושט
גישה פרגמטית רב-זרועית רב-שלבית יכולה להיות מנוסחת כשלושה שערים מוגדרים מראש ומוכרים קלינית, ולא כפלטפורמה אדפטיבית פרמטרית מאוד: שלב 1 בוחר התערבויות לפי תגובה מוקדמת לשומן כבד (MRI-PDFF ≥ירידה יחסית של 30%) באמצעות שערים מבוססי ראיות102; שלב 2 מעריך את דינמיקת הפיברוזיס באמצעות ELF ו/או MRE (עם העשרת MEFIB אופציונלית) במשך 24–48 שבועות104,105; שלב 3 מאשר עמידות עם תוצאה מורכבת מוגדרת מראש ופרופיל בטיחות. הדיווח צריך לעקוב אחרי הרחבת CONSORT (ACE) של עיצובים אדפטיביים כדי להבטיח שקיפות של התאמות מתוכננות מראש, כללי עצירה, ובקרת שגיאות מסוג I106. תבנית "ביצוע" זו שומרת על המסגרת ניתנת ליישום תוך שמירה על העשרה מכנית באמצעות סמנים ביולוגיים נלווים (LBP/sCD14, BA/FGF19–C4, IL-1β/GSDMD-N).
מסקנות
על פני רצף רצף של כשל מחסום כלי דם אפיתל ומעיים, זרם מולקולרי פורטלי, הגברה של TLR4–NF-κB ופירופטוזיס מתווך NLRP3, הראיות הנוכחיות מגדירות ארכיטקטורה אימונומטבולית של מחלות ל-MASLD/MASH. ארגון מחדש של החיבורים ההדוקים באפיתל יחד עם דליפת GVB מוריד את סף ההפעלה של מערכת החיסון המולדת הסינוסואידלית; קלטים שמקורם במעיים — LPS, אתנול אנדוגני ופרופילים מבולגנים של חומצות מרה — מרגישים אז על ידי TLR4 הכבדי ומתפשטים דרך מפלסים דלקתיים, עד שלבסוף מתכנסים לאיתות NLRP3–caspase-1–IL-1β/IL-18 כדי להניע דלקת ופיברוזיס 26,27,33. עמוד שדרה זה מחובר היררכית למעגלי BA–FXR/TGR5, SCFA–GPR41/43 ו-AMPK/Nrf2, ומאפשר כיוון דו-כיווני בין חילוף החומרים לחיסון 9,10. בהקשר ביולוגי זה, חומרים טבעיים מרובי מטרות מאפשרים התערבות "קואקסיאלית" במחסומי מחסומים, קשרי איתות קולטנים וספי מטבוליזם: ברברין, על ידי עיכוב BSH חיידקי, עיצוב מחדש של מאגר חומצות המרה והפעלת ציר FXR–FGF15 האיליאלי, מפעיל שליטה מערכתית נמוכה על קריאות אימונומטבוליות תוך-כבדיות ומפחית את MRI-PDFF בניסוי שלב 2 של הקומפלקס היונישלו 12,13. טיפולים מבוססי פורמולה ופוליסכרידים מוסיפים אותות תרגום לתיקון מחסום ולהגבלת דלקת 15,17. יחד, ציר המעי-כבד מספק בסיס מעשי ליישור מנגנונים, סמנים ביולוגיים ונקודות קצה קליניות בתוך מערכת קואורדינטות אחת.
תרגום ידע זה לתוצאות דורש שלושה התפתחויות מרכזיות. ראשית, יש צורך בראיות אנושיות ישירות ל-GVB וקריאות פונקציונליות שניתן לשחזר. מדדים מורכבים שתופסים פריצה מתואמת אפיתליאלי–אנדותליאלית — פרופיל סדרת זמן של צום ו-LBP/sCD14 סטנדרטי לאחר הארוחה הקשורים לדינמיקת FGF19/C4 של סינתזת חומצות מרה ומשוב איליאלי — המוטמעים בהדמיה אורכת ומעקב קליני יקבעו שרשרת "מחסום → חשיפה → האיברים" הניתנת לאימות26,27. שנית, יש להבהיר את הגשרים בין מולטי-אומיקס לנקודות קצה מדורגות: מטהגנומיקה/טרנסקריפטומיקה פרוספקטיבית עם ספקטרום BA פלזמה וצואה ו-SCFAs מיושרים לספי הדמיה—ירידה יחסית של MRI-PDFF ב-≥30% ב-12–24 שבועות כשער ביניים, ו-MRE (~3.3–3.5 קילופסקל) עם ELF (9.8/11.3) ב-24–48 שבועות לפיברוזיס וסטרטיפיקציה פרוגנוסטית—כך שאותות מכניים יתפסו את אותו מסגרת כמו קריאות מבניות ותוצאה102, 105. שלישית, השערות הסטרטיפיקציה צריכות להיות מוגדרות מראש וניתנות להפרכה: אנשים ברבעון העליון של הצום או LBP/sCD14 הסטנדרטי לאחר הארוחה אמורים להיות בעלי סיכוי גבוה יותר להשיג ירידה של ≥30% PDFF עם הגנה מתואמת על מחסום/GVB ונרמוליזציה של מיקרוביוטה–BA, בליווי ירידות תואמות ב-LBP/sCD14; אלו עם חתימות גבוהות ב-IL-1β או NLRP3/פירופטוזיס (GSDMD-N) צפויים להראות שיפור ב-ELF/MRE כאשר חסימת NLRP3–caspase-1 מחוברת לכיוון מחדש של AMPK/Nrf2; הסתמכות על אסטרטגיות מחסום בלבד בביולוגיה הדומיננטית של דלקת מסכנת את חוסר ההתאמה המוכר של הפחתת סטיטוסיס ללא תועלת לפיברוזיס 1,7,102.
מבחינה מתודולוגית, עיצובים אדפטיביים רב-זרועים רב-שלביים ומונעי סמנים ביולוגיים יכולים להגדיל את היעילות והשחזוריות בתוכניות רב-מנגנוניות. שלב ראשוני המוגבל על ידי ירידה ב-MRI-PDF של ≥30% יכול למיין זרועות בעלות הסתברות נמוכה; שלב שני הכולל ELF/MRE יכול לעדכן אקראיות בתוך שכבות דומיננטיות במחסום, אינפלמזום דומיננטי ו-BA–FXR; שלב שלישי יכול להעריך תוצאות הדמיה קלינית משולבת של 48 שבועות. ספי השער, כללי העצירה והקצאת α צריכים להיות רשומים מראש ולדווח בשקיפות; בדיקות ביומסה נמוכה (למשל, rDNA במחזור או רקמה 16S) דורשות בקרות שליליות קפדניות וצינורות דה-קונטמינציה, וסמני Q צריכים להבטיח עקביות אצווה ומעקב על בסיס חומר, חשיפה ב-vivo וקריאות פרמקודינמיות101,106. שילוב עמוד השדרה של מחסום–חיסון מולד–מטבולי עם שכבות מוגדרות מראש, נקודות קצה היררכיות וניסויים אדפטיביים יכול להעביר התערבויות רב-מטריות מהוכחת היתכנות לתועלת מתמשכת באוכלוסיות מוגדרות, להאיר הטרוגניות ביולוגית ב-MASLD/MASH ולספק מסגרת תפעולית לטיפול משולב מדויק וניתן לתרגום.
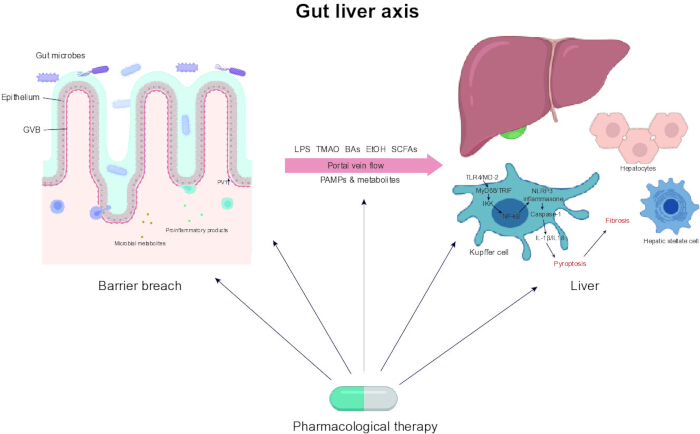
איור 1: תקציר גרפי של ציר המעי-כבד ב-MASLD/MASH. תרשים זה מסכם את המנגנונים המרכזיים וההשלכות הטיפוליות של ציר המעי-כבד ב-MASLD והתקדמותו ל-MASH. הוא ממחיש כיצד חומרים שמקורם במעי (כגון LPS, BAs, SCFAs, TMAO) עוברים לכבד דרך וריד הפורטל בעת פגיעה במחסום המעיים, ומפעילים תגובות חיסוניות (למשל, TLR4–NF-κB, דלקת NLRP3) שמניעות דלקת, פגיעה בכבד ופיברוזיס. המסגרת מדגישה גם טיפולים רב-מטרתיים, ומבססת אסטרטגיה להתערבות מונחית ביומרקרים, שכבתית, ב-MASLD/MASH. קיצורים: MASLD = מחלת כבד סטאטית הקשורה לתפקוד מטבולי לקויה; MASH = דלקת כבד מטבולית הקשורה לתפקוד לקוי; LPS = ליפופוליסכריד; BAs = חומצות מרה; SCFAs = חומצות שומן קצרות שרשרת; TMAO = טרימתילאמין N-אוקסיד; TLR4 = קולטן דמוי טול 4; NF-κB = גורם גרעיני קאפה B; NLRP3 = חלבון המכיל NOD-, LRR-, וחלבון תחום פירין 3. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
גילויים
למחברים אין ניגודי עניינים לחשוף.
תודות
עבודה זו נתמכה על ידי תוכנית המדע והטכנולוגיה לרפואה סינית מסורתית של מחוז ג'ג'יאנג (מס' 2024ZL1181), ותוכנית המדע והטכנולוגיה העירונית של ג'ינחואה, פרויקט מפתח לפיתוח חברתי (מס' 2024-3-071).
מקורות
- Soppert, J., et al. Blood endotoxin levels as biomarker of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 21, 2746-2758 (2023).
- Yuan, J., et al. Fatty liver disease caused by high-alcohol-producing Klebsiella pneumoniae. Cell Metab. 30, 675-688.e7 (2019).
- Sharifnia, T., et al. Hepatic TLR4 signaling in obese NAFLD. Am J Physiol Gastrointest Liver Physiol. 309, G270-G278 (2015).
- Miura, K., Yang, L., van Rooijen, N., Ohnishi, H., Seki, E. Hepatic recruitment of macrophages promotes nonalcoholic steatohepatitis through CCR2. Am J Physiol Gastrointest Liver Physiol. 302, G1310-G1321 (2012).
- Seki, E., et al. TLR4 enhances TGF-beta signaling and hepatic fibrosis. Nat Med. 13, 1324-1332 (2007).
- Wree, A., et al. NLRP3 inflammasome activation results in hepatocyte pyroptosis, liver inflammation, and fibrosis in mice. Hepatology. 59, 898-910 (2014).
- Mridha, A. R., et al. NLRP3 inflammasome blockade reduces liver inflammation and fibrosis in experimental NASH in mice. J Hepatol. 66, 1037-1046 (2017).
- Ioannou, G. N., et al. Genetic deletion or pharmacologic inhibition of the Nlrp3 inflammasome did not ameliorate experimental NASH. J Lipid Res. 64, 100330(2023).
- Neuschwander-Tetri, B. A., et al. Farnesoid X nuclear receptor ligand obeticholic acid for non-cirrhotic, non-alcoholic steatohepatitis (FLINT): a multicentre, randomised, placebo-controlled trial. Lancet. 385, 956-965 (2015).
- Thomas, C., et al. TGR5-mediated bile acid sensing controls glucose homeostasis. Cell Metab. 10, 167-177 (2009).
- Gao, W., et al. Dissecting the crosstalk between Nrf2 and NF-κB response pathways in drug-induced toxicity. Front Cell Dev Biol. 9, 809952(2021).
- Sun, R., et al. Orally administered berberine modulates hepatic lipid metabolism by altering microbial bile acid metabolism and the intestinal FXR signaling pathway. Mol Pharmacol. 91, 110-122 (2017).
- Tian, Y., et al. Berberine directly affects the gut microbiota to promote intestinal farnesoid X receptor activation. Drug Metab Dispos. 47, 86-93 (2019).
- Harrison, S. A., et al. A phase 2, proof of concept, randomised controlled trial of berberine ursodeoxycholate in patients with presumed non-alcoholic steatohepatitis and type 2 diabetes. Nat Commun. 12, 5503(2021).
- Liu, Q., et al. Efficacy and safety of Qushi Huayu, a traditional Chinese medicine, in patients with nonalcoholic fatty liver disease in a randomized controlled trial. Phytomedicine. 130, 155398(2024).
- Cui, H., et al. Da-Chai-Hu decoction ameliorates high fat diet-induced nonalcoholic fatty liver disease through remodeling the gut microbiota and modulating the serum metabolism. Front Pharmacol. 11, 584090(2020).
- Chen, Y. S., Chen, Q. Z., Wang, Z. J., Hua, C. Anti-inflammatory and hepatoprotective effects of Ganoderma lucidum polysaccharides against carbon tetrachloride-induced liver injury in Kunming mice. Pharmacology. 103, 143-150 (2019).
- Zheng, N., Wang, H., Zhu, W., Li, Y., Li, H. Astragalus polysaccharide attenuates nonalcoholic fatty liver disease through THDCA in high-fat diet-fed mice. J Ethnopharmacol. 320, 117401(2024).
- Saeed, H., et al. Microbiome-centered therapies for the management of metabolic dysfunction-associated steatotic liver disease. Clin Mol Hepatol. 31, S94-S111 (2025).
- Al-Sadi, R., Guo, S., Ye, D., Rawat, M., Ma, T. Y. TNF-α modulation of intestinal tight junction permeability is mediated by NIK/IKK-α axis activation of the canonical NF-κB pathway. Am J Pathol. 186, 1151-1165 (2016).
- Marchiando, A. M., et al. Caveolin-1-dependent occludin endocytosis is required for TNF-induced tight junction regulation in vivo. J Cell Biol. 189, 111-126 (2010).
- Jakobsson, H. E., et al. The composition of the gut microbiota shapes the colon mucus barrier. EMBO Rep. 16, 164-177 (2015).
- Allam-Ndoul, B., Castonguay-Paradis, S., Veilleux, A. Gut microbiota and intestinal trans-epithelial permeability. Int J Mol Sci. 21, 6402(2020).
- Takiishi, T., Fenero, C. I. M., Câmara, N. O. S. Intestinal barrier and gut microbiota: shaping our immune responses throughout life. Tissue Barriers. 5, e1373208(2017).
- Kimura, I., et al. The gut microbiota suppresses insulin-mediated fat accumulation via the short-chain fatty acid receptor GPR43. Nat Commun. 4, 1829(2013).
- Spadoni, I., et al. A gut-vascular barrier controls the systemic dissemination of bacteria. Science. 350, 830-834 (2015).
- Mouries, J., et al. Microbiota-driven gut vascular barrier disruption is a prerequisite for non-alcoholic steatohepatitis development. J Hepatol. 71, 1216-1228 (2019).
- Di Tommaso, N., Santopaolo, F., Gasbarrini, A., Ponziani, F. R. The gut-vascular barrier as a new protagonist in intestinal and extraintestinal diseases. Int J Mol Sci. 24, 1470(2023).
- Vinolo, M. A., Rodrigues, H. G., Nachbar, R. T., Curi, R. Regulation of inflammation by short chain fatty acids. Nutrients. 3, 858-876 (2011).
- Corrêa-Oliveira, R., Fachi, J. L., Vieira, A., Sato, F. T., Vinolo, M. A. Regulation of immune cell function by short-chain fatty acids. Clin Transl Immunology. 5, e73(2016).
- Larabi, A. B., Masson, H. L. P., Bäumler, A. J. Bile acids as modulators of gut microbiota composition and function. Gut Microbes. 15, 2172671(2023).
- Kim, S. Y., et al. Pro-inflammatory hepatic macrophages generate ROS through NADPH oxidase 2 via endocytosis of monomeric TLR4-MD2 complex. Nat Commun. 8, 2247(2017).
- Yu, L., et al. The NLRP3 inflammasome in non-alcoholic fatty liver disease and steatohepatitis: therapeutic targets and treatment. Front Pharmacol. 13, 780496(2022).
- Wang, L., Hauenstein, A. V. The NLRP3 inflammasome: mechanism of action, role in disease and therapies. Mol Aspects Med. 76, 100889(2020).
- Liang, J. Q., et al. Dietary cholesterol promotes steatohepatitis related hepatocellular carcinoma through dysregulated metabolism and calcium signaling. Nat Commun. 9, 4490(2018).
- Xu, B., et al. Gasdermin D plays a key role as a pyroptosis executor of non-alcoholic steatohepatitis in humans and mice. J Hepatol. 68, 773-782 (2018).
- Tilg, H., Cani, P. D., Mayer, E. A. Gut microbiome and liver diseases. Gut. 65, 2035-2044 (2016).
- Ye, D., Ma, I., Ma, T. Y. Molecular mechanism of tumor necrosis factor-alpha modulation of intestinal epithelial tight junction barrier. Am J Physiol Gastrointest Liver Physiol. 290, G496-G504 (2006).
- Farhadi, A., et al. Susceptibility to gut leakiness: a possible mechanism for endotoxaemia in non-alcoholic steatohepatitis. Liver Int. 28, 1026-1033 (2008).
- Wree, A., et al. NLRP3 inflammasome activation is required for fibrosis development in NAFLD. J Mol Med (Berl). 92, 1069-1082 (2014).
- Panossian, A. Trends and pitfalls in the progress of network pharmacology research on natural products. Pharmaceuticals (Basel). 18, 538(2025).
- Li, L., et al. Network pharmacology: a bright guiding light on the way to explore the personalized precise medication of traditional Chinese medicine. Chin Med. 18, 146(2023).
- Stroeve, J. H., et al. Intestinal FXR-mediated FGF15 production contributes to diurnal control of hepatic bile acid synthesis in mice. Lab Invest. 90, 1457-1467 (2010).
- Song, L., et al. Hepatic FXR-FGF4 is required for bile acid homeostasis via an FGFR4-LRH-1 signal node under cholestatic stress. Cell Metab. 37, 104-120.e9 (2025).
- Lan, Q., et al. Hepatoprotective effect of Qushihuayu formula on non-alcoholic steatohepatitis induced by MCD diet in rat. Chin Med. 16, 27(2021).
- Sterne, J. A. C., et al. 2: a revised tool for assessing risk of bias in randomised trials. BMJ. 366, 14898(2019).
- Sterne, J. A., et al. ROBINS-I: a tool for assessing risk of bias in non-randomised studies of interventions. BMJ. 355, i4919(2016).
- Verbeke, L., et al. The FXR agonist obeticholic acid prevents gut barrier dysfunction and bacterial translocation in cholestatic rats. Am J Pathol. 185, 409-419 (2015).
- Zhong, M., et al. Astragalus mongholicus polysaccharides ameliorate hepatic lipid accumulation and inflammation as well as modulate gut microbiota in NAFLD rats. Food Funct. 13, 7287-7301 (2022).
- Bhattacharyya, S., et al. Toll-like receptor 4 signaling augments transforming growth factor-β responses: a novel mechanism for maintaining and amplifying fibrosis in scleroderma. Am J Pathol. 182, 192-205 (2013).
- Ali, A. A., Fouda, A., Abdelaziz, E. S., Abdelkawy, K., Ahmed, M. H. The promising role of CCL2 as a noninvasive marker for nonalcoholic steatohepatitis diagnosis in Egyptian populations. Eur J Gastroenterol Hepatol. 33, e954-e960 (2021).
- Menzel, A., et al. Common and novel markers for measuring inflammation and oxidative stress ex vivo in research and clinical practice-which to use regarding disease outcomes. Antioxidants (Basel). 10, 414(2021).
- Trubnikov, A., et al. Effectiveness and safety of a shorter treatment regimen in a setting with a high burden of multidrug-resistant tuberculosis. Int J Environ Res Public Health. 18, 4121(2021).
- Chang, C. J., et al. Ganoderma lucidum reduces obesity in mice by modulating the composition of the gut microbiota. Nat Commun. 6, 7489(2015).
- Liu, Y. T., et al. Extensive intestinal first-pass elimination and predominant hepatic distribution of berberine explain its low plasma levels in rats. Drug Metab Dispos. 38, 1779-1784 (2010).
- Tan, X. S., et al. Tissue distribution of berberine and its metabolites after oral administration in rats. PLoS One. 8, e77969(2013).
- Chen, W., et al. Bioavailability study of berberine and the enhancing effects of TPGS on intestinal absorption in rats. AAPS PharmSciTech. 12, 705-711 (2011).
- Roy, S., et al. Hepatic NLRP3-derived Hsp70 binding to TLR4 mediates MASLD to MASH progression upon inhibition of PP2A by harmful algal bloom toxin microcystin, a second hit. Int J Mol Sci. 24, 16354(2023).
- Zeng, H., Umar, S., Rust, B., Lazarova, D., Bordonaro, M. Secondary bile acids and short chain fatty acids in the colon: a focus on colonic microbiome, cell proliferation, inflammation, and cancer. Int J Mol Sci. 20, 1214(2019).
- Visekruna, A., Luu, M. The role of short-chain fatty acids and bile acids in intestinal and liver function, inflammation, and carcinogenesis. Front Cell Dev Biol. 9, 703218(2021).
- Di Bisceglie, A. M., et al. Pharmacokinetics and pharmacodynamics of HTD1801 (berberine ursodeoxycholate, BUDCA) in patients with hyperlipidemia. Lipids Health Dis. 19, 239(2020).
- Nejati, L., Movahedi, A., Salari, G., Moeineddin, R., Nejati, P. The effect of berberine on lipid profile, liver enzymes, and fasting blood glucose in patients with non-alcoholic fatty liver disease (NAFLD): a randomized controlled trial. Med J Islam Repub Iran. 36, 39(2022).
- Nie, Q., et al. The clinical efficacy and safety of berberine in the treatment of non-alcoholic fatty liver disease: a meta-analysis and systematic review. J Transl Med. 22, 225(2024).
- Feng, R., et al. Transforming berberine into its intestine-absorbable form by the gut microbiota. Sci Rep. 5, 12155(2015).
- Gu, L., et al. Berberine ameliorates intestinal epithelial tight-junction damage and down-regulates myosin light chain kinase pathways in a mouse model of endotoxinemia. J Infect Dis. 203, 1602-1612 (2011).
- Yan, F., et al. Berberine promotes recovery of colitis and inhibits inflammatory responses in colonic macrophages and epithelial cells in DSS-treated mice. Am J Physiol Gastrointest Liver Physiol. 302, G504-G514 (2012).
- Zhang, H., et al. Berberine suppresses LPS-induced inflammation through modulating Sirt1/NF-κB signaling pathway in RAW264.7 cells. Int Immunopharmacol. 52, 93-100 (2017).
- Mai, W., et al. Berberine inhibits Nod-like receptor family pyrin domain containing 3 inflammasome activation and pyroptosis in nonalcoholic steatohepatitis via the ROS/TXNIP axis. Front Pharmacol. 11, 185(2020).
- Wei, X., Wang, C., Hao, S., Song, H., Yang, L. The therapeutic effect of berberine in the treatment of nonalcoholic fatty liver disease: a meta-analysis. Evid Based Complement Alternat Med. 2016, 3593951(2016).
- Leng, J., et al. Amelioration of non-alcoholic steatohepatitis by Qushi Huayu decoction is associated with inhibition of the intestinal mitogen-activated protein kinase pathway. Phytomedicine. 66, 153135(2020).
- Feng, Q., et al. Qushi Huayu decoction inhibits hepatic lipid accumulation by activating AMP-activated protein kinase in vivo and in vitro. Evid Based Complement Alternat Med. 2013, 184358(2013).
- Sun, Q., et al. Qushi Huayu decoction attenuated hepatic lipid accumulation via JAK2/STAT3/CPT-1A-related fatty acid β-oxidation in mice with non-alcoholic steatohepatitis. Pharm Biol. 60, 2124-2133 (2022).
- Ni, Y., et al. Qushi Huayu decoction ameliorates non-alcoholic fatty liver disease in rats by modulating gut microbiota and serum lipids. Front Endocrinol (Lausanne). 14, 1272214(2023).
- Yang, W., et al. Approaches to establish Q-markers for the quality standards of traditional Chinese medicines. Acta Pharm Sin B. 7, 439-446 (2017).
- Xiong, H., Yu, L. X., Qu, H. Batch-to-batch quality consistency evaluation of botanical drug products using multivariate statistical analysis of the chromatographic fingerprint. AAPS PharmSciTech. 14, 802-810 (2013).
- Mousa, A. M., Mahmoud, M., AlShuraiaan, G. M. Resmetirom: the first disease-specific treatment for MASH. Int J Endocrinol. 2025, 6430023(2025).
- Dahiya, K., Palkar, M., Sharma, S. Unlocking the potential of THR-β agonist therapies: resmetirom's chemistry, biology, and patent insights. Naunyn Schmiedebergs Arch Pharmacol. 398, 9703-9720 (2025).
- Wang, R., et al. Dachaihu decoction inhibits hypernutrition-induced liver metastasis from colorectal cancer by maintaining the gut vascular barrier. Cancer Pathog Ther. 1, 98-110 (2023).
- Xu, S., et al. Da-Chai-Hu-Tang protects from acute intrahepatic cholestasis by inhibiting hepatic inflammation and bile accumulation via activation of PPARα. Front Pharmacol. 13, 847483(2022).
- Mou, Z., et al. The efficacy and safety of Dachaihu decoction in the treatment of nonalcoholic fatty liver disease: a systematic review and meta-analysis. Front Med (Lausanne). 11, 1397900(2024).
- Chen, Y., et al. Polysaccharides from traditional Chinese medicines: extraction, purification, modification, and biological activity. Molecules. 21, 1705(2016).
- Ying, M., et al. Ganoderma atrum polysaccharide ameliorates intestinal mucosal dysfunction associated with autophagy in immunosuppressed mice. Food Chem Toxicol. 138, 111244(2020).
- Chen, X., et al. Research progress on the therapeutic effect of polysaccharides on non-alcoholic fatty liver disease through the regulation of the gut-liver axis. Int J Mol Sci. 23, 11710(2022).
- Bergheim, I., Moreno-Navarrete, J. M. The relevance of intestinal barrier dysfunction, antimicrobial proteins and bacterial endotoxin in metabolic dysfunction-associated steatotic liver disease. Eur J Clin Invest. 54, e14224(2024).
- Yu, M., et al. Multiple fingerprints and spectrum-effect relationship of polysaccharides from Saposhnikoviae Radix. Molecules. 27, 5278(2022).
- Swackhamer, C., Jang, S., Park, B. R., Hamaker, B. R., Jung, S. K. Structure-based standardization of prebiotic soluble dietary fibers based on monosaccharide composition, degree of polymerization, and linkage composition. Carbohydr Polym. 367, 123949(2025).
- Zhu, Y., et al. Monosaccharide composition and glycosidic linkages analysis by ultra high performance liquid chromatography-triple quadrupole tandem mass spectrometry-case study of plant polysaccharides. Int J Biol Macromol. 281, 136471(2024).
- Zhu, B., et al. Characterization and comparison of bioactive polysaccharides from Grifola frondosa by HPSEC-MALLS-RID and saccharide mapping based on HPAEC-PAD. Polymers. 15, 208(2022).
- Suvarna, R., Shetty, S., Pappachan, J. M. Efficacy and safety of resmetirom, a selective thyroid hormone receptor-β agonist, in the treatment of metabolic dysfunction-associated steatotic liver disease (MASLD): a systematic review and meta-analysis. Sci Rep. 14, 19790(2024).
- An, L., et al. The role of gut-derived lipopolysaccharides and the intestinal barrier in fatty liver diseases. J Gastrointest Surg. 26, 671-683 (2022).
- Lau, H. C., Zhang, X., Yu, J. Gut microbiome in metabolic dysfunction-associated steatotic liver disease and associated hepatocellular carcinoma. Nat Rev Gastroenterol Hepatol. 22, 619-638 (2025).
- Hoshiko, H., et al. An observational study to evaluate the association between intestinal permeability, leaky gut related markers, and metabolic health in healthy adults. Healthcare (Basel). 9, 1583(2021).
- Mohr, A. E., Crawford, M., Jasbi, P., Fessler, S., Sweazea, K. L. Lipopolysaccharide and the gut microbiota: considering structural variation. FEBS Lett. 596, 849-875 (2022).
- Caussy, C., et al. Serum bile acid patterns are associated with the presence of NAFLD in twins, and dose-dependent changes with increase in fibrosis stage in patients with biopsy-proven NAFLD. Aliment Pharmacol Ther. 49, 183-193 (2019).
- Pattni, S. S., Brydon, W. G., Dew, T., Walters, J. R. Fibroblast growth factor 19 and 7α-hydroxy-4-cholesten-3-one in the diagnosis of patients with possible bile acid diarrhea. Clin Transl Gastroenterol. 3, e18(2012).
- Walters, J. R., et al. The response of patients with bile acid diarrhoea to the farnesoid X receptor agonist obeticholic acid. Aliment Pharmacol Ther. 41, 54-64 (2015).
- Schumacher, N., et al. Cell-autonomous hepatocyte-specific GP130 signaling is sufficient to trigger a robust innate immune response in mice. J Hepatol. 74, 407-418 (2021).
- Li, X., et al. Short-chain fatty acids in nonalcoholic fatty liver disease: new prospects for short-chain fatty acids as therapeutic targets. Heliyon. 10, e26991(2024).
- Scheffler, L., et al. Widely used commercial ELISA does not detect precursor of haptoglobin2, but recognizes properdin as a potential second member of the zonulin family. Front Endocrinol (Lausanne). 9, 22(2018).
- Tripathi, A., et al. Identification of human zonulin, a physiological modulator of tight junctions, as prehaptoglobin-2. Proc Natl Acad Sci U S A. 106, 16799-16804 (2009).
- Salter, S. J., et al. Reagent and laboratory contamination can critically impact sequence-based microbiome analyses. BMC Biol. 12, 87(2014).
- Stine, J. G., et al. Change in MRI-PDFF and histologic response in patients with nonalcoholic steatohepatitis: a systematic review and meta-analysis. Clin Gastroenterol Hepatol. 19, 2274-2283.e5 (2021).
- Tamaki, N., et al. Clinical utility of 30% relative decline in MRI-PDFF in predicting fibrosis regression in non-alcoholic fatty liver disease. Gut. 71, 983-990 (2022).
- Saarinen, K., et al. Enhanced liver fibrosis test predicts liver-related outcomes in the general population. JHEP Rep. 5, 100765(2023).
- Jung, J., et al. MRE combined with FIB-4 (MEFIB) index in detection of candidates for pharmacological treatment of NASH-related fibrosis. Gut. 70, 1946-1953 (2021).
- Dimairo, M., et al. The adaptive designs CONSORT extension (ACE) statement: a checklist with explanation and elaboration guideline for reporting randomised trials that use an adaptive design. BMJ. 369, m115(2020).