מטרת פרוטוקול זה היא לאפשר מדידת פלואורסצנציה כמותית לאורך החיים של גשושי ריבוגלו עבור תהליכי דימות RNA ניתנים לשחזור במבחנה, בתאי יונקים חיים, ובמודלים תלת-ממדיים תלת-ממדיים. אנו מתכננים תהליכי הכנת דגימות, אספקת גשושים, איסוף נתונים וניתוח כמותי להפקת מדידות חיים של פלואורסצנציה בלתי מוטה.
מאמר שיטה
אפיון גשושי ריבוגלו במבחנה כבסיס להדמיה פלואורסצנטית לאורך חיים בתאים חיים ביונקים ובמודלים תלת-ממדיים של תאים
* These authors contributed equally
† These authors contributed equally
במאמר זה
סיכום
תקציר
כמעט 80% מהגנום האנושי מתועתק ל-RNA, בעוד שפחות מ-2% מקודדים לחלבונים, מה שמעיד שרוב תמלולי היונקים אינם מקודדים ומשתתפים בתהליכים רגולטוריים מגוונים. לכן, חישה והמחשה כמותית של מולקולות RNA במערכות תאים חיות של יונקים הם קריטיים להבנת דינמיקת RNA ואינטראקציות, אך עדיין מאתגרים טכנית, במיוחד בסביבות תאיות מורכבות. ריבוגלו הוא חיישן RNA מקודד גנטית, שבו אפטמר RNA קצר קושר גלאי מולקולה קטנה, ומייצר דלקת פלואורסצנציה מדידה לכל החיים שניתן לזהות באמצעות מיקרוסקופ דמיה פלואורסצנטי לאורך חיי התקופה (FLIM). כאן אנו מציגים תהליך עבודה מפורט עבור Riboglow-FLIM, הכולל הכנת דגימות, רכישת תמונות וניתוח כמותי של מערכי הנתונים של FLIM. מטרת פרוטוקול זה היא לאפשר זיהוי RNA כמותי מבוסס חיים פלואורסצנטי באמצעות ריבוגלו בסביבות מבוקרות ותאים חיים. הפרוטוקול מודגם במבחנה, שם נמדדים שינויים תלויי RNA לאורך חיי, ובתאים יונקים חיים, שם נקבעים רכישת FLIM, בחירת אזור עניין וניתוח תת-תאי. יישום מוצלח דורש שליטה קפדנית בפרמטרים ניסיוניים ורכישתיים. מודגשים שיקולים מרכזיים ליישום שניתן לשחזור. ביחד, פרוטוקול זה משמש כהפניה מעשית ליישום Riboglow-FLIM ולהערכת הדמיה כמותית של RNA בתאים חיים.
מבוא
בשנים האחרונות, התקדמות בהבנת תפקיד ה-RNA בתפקוד התאים יצרה צורך גובר להמחיש RNA בתאים חיים, במיוחד במצבי מחלה. עם זאת, היעדר RNA פלואורסצנטי טבעי מחייב מערכות תיוג מהונדסות, לעיתים משולבות עם גלאים פלואורוגניים חיצוניים. כתוצאה מכך, פותחו מגוון רחב של גישות הדמיית RNA כדי לאפשר ויזואליזציה של לוקליזציה, דינמיקה ואינטראקציות של RNA במערכות חיות.
סוג מרכזי של שיטות הדמיית RNA מבוסס על תגיות מקודדות גנטית. מערכות פלואורופור-אפטמרים ואסטרטגיות תיוג מבוססות חלבון, כמו מערכת מעטפת חלבון בקטריופאג' MS2 (MCP), נשארות בשימוש נרחב 1,2. במערכת MS2, לולאות הגזע של ה-RNA נקשרות על ידי חלבוני שכבת בקטריופאג' הממוזגים לחלבונים פלואורסצנטיים כדי לעקוב אחרי תמלילים בתאים חיים. למרות שימושיות, גישה זו דורשת תגי RNA גדולים יחסית וייצור רכיבי חלבון נוספים, שיכולים להפריע להתנהגות RNA טבעית 1,2,3. מערכות אפטמר פלואורופור, כולל תרד4 וגרסאות נוספות כמו ברוקולי5, תירס6, מנגו7 ופלפל8, מאפשרות הפעלה ישירה של פלואורסצנציה בעת קשירת הליגנד ומציעות גודל תג מופחת. עם זאת, מערכות אלו עלולות לסבול מעוצמת אות מוגבלת, פלואורסצנציה ברקע, ואתגרים במולטיפלקסינג בסביבות תאיות מורכבות3.
אסטרטגיות חלופיות כוללות מערכות כיבוי פלואורופור וגישות מבוססות היברידיזציה. מערכות פילואורופור-קוונשר, כולל RhoBAST, מייצרות פלואורסצנציה לאחר הפרעת הקירור לאחר קישור RNA, אך עלולות להציג אות רקע ורגישות לריכוז הפרוב 3,9. שיטות הדמיית RNA מבוססות היברידיזציה, כגון smFISH ומשואות מולקולריות, מספקות ספציפיות גבוהה אך דורשות אספקת פרוב ולעיתים מוגבלות בהדמיית תאים חיים לטווח ארוך עקב קינטיקה של קישור ואינטראקציות מחוץ למטרה 10,11,12. ביחד, גישות אלו מדגישות אתגרים מרכזיים בהדמיית RNA תאים חיים 3,13,14. למרות ההתקדמות הזו, קיימת מחסור בתהליכי עבודה סטנדרטיים להדמיית RNA פלואורסצנציה כמותית מבוססת חיים במערכות ביולוגיות מורכבות.
ריבוגלו מנסה להתגבר על רבות מהמגבלות הללו. ריבוגלו הוא מערכת תיוג RNA מקודדת גנטית המשלבת "תג" RNA קצר שמקורו בריבוסוויץ' עם "גלאי" סינתטי של קובלאמין (Cbl)-פלואורופור סינתטי, המאפשר המחשה של RNA של תאים חיים15. Cbl, מדליק טבעי, הופך מופרד מרחבית מהפלואורופור בעת קשירת התג, ויוצר הפלואורסצנציה "נדלקת" כמותית בעוצמה15. הרחבת ריבוגלו למיקרוסקופ דימות פלואורסצנטי לאורך חיי (FLIM) חשפה תוצאה שאינה תלויה ברובה בריכוז הפלואורופור ובעוצמת הגירור, עם חיצון נגד שונות במשלוח גלאי והבדלים בין-משתמשים16,17. חשוב יותר, שינוי האפטמר של ה-RNA מוביל לחיים ייחודיים של פלואורסצנציה, כפי שמודגם ב-FLIM16. תאריכי חיים אורתוגונליים אלו מאפשרים הדמיית RNA מרוב-פלקסית, ומאפשרים לראות שני RNA עם פלואורופור16 יחיד. הפלטפורמה אומתה על פני מודלים יונקים מגוונים, כולל U-2 OS, HeLa, MDA-MB-231 ותאי HOS, וכן עם ויזואליזציה סימולטנית של ACTB mRNA ו-NORAD lncRNA 15,16,17. לאחרונה, ריבוגלו שימש להמחשת RNA בעוברים חיים18. יחד, מחקרים אלו קובעים את ריבוגלו כמערכת קומפקטית ורב-תכלית להדמיית RNA מרובה כמותית.
במערכות ביולוגיות, FLIM יושם באופן נרחב לחקר אינטראקציות מולקולריות, מטבוליזם ודינמיקה תאית במערכות חיות, בשל רגישותו לסביבה המולקולרית המקומית ועמידותו היחסית לשונות ניסיונית19. FLIM מודד את קצב דעיכת המצב המעורר מדגימת פלואורסצנטית, בדרך כלל באמצעות ספירת פוטון בודד (TCSPC) במתאם זמן. TCSPC מודד את הזמן בין גירוי הלייזר של הדגימה לבין הגעת הפוטון הנפלט לגלאי, ומרכיב את אורך החיים של הפוטונים שנרכשו להתפלגות של זמן הגעת הפוטונים לכל מדידה. הדמיה מבוססת חיים מציעה יתרון חשוב בכך שהיא מפחיתה את התלות בריכוזים של חלקים פלואורוגניים במערכת, כולל גלאי טעון לתאים, רמת ביטוי RNA ושינויים במסלול האופטיים. עם זאת, ניסויי FLIM הם תובעניים מבחינה רעיונית וטכנית, ודורשים שליטה קפדנית על רכישת פוטונים, התאמת מודלים ותהליכי ניתוח.
כאן מוצג פרוטוקול מפורט ל-Riboglow-FLIM, המתאר תהליכי עבודה להכנת דגימות, רכישת תמונה וניתוח כמותי של מערכי חיים של פלואורסצנציה. מטרת מחקר זה היא לקבוע זרימת עבודה שניתנת לשחזור עבור הדמיה כמותית של ריבוגלו-FLIM במערכות ביולוגיות. Riboglow-FLIM מתאים במיוחד להשוואות כמותיות ודורש מומחיות מיוחדת בחומרה וניתוח FLIM. הפרוטוקול מודגם במבחנה, שם נמדדים שינויים תלויי RNA, ובתאים יונקים חיים ובמערכות תאיות תלת-ממדיות שבהן נקבעים רכישת FLIM, בחירת אזור עניין וחילוץ כמותי לאורך החיים באמצעות גשושי ריבוגלו. פרוטוקול זה מניח את היסודות החשובים להקמת תהליכי רכישת FLIM ועקרונות לניתוח נתוני FLIM כמותי ובלתי מוטה, ומאפשר יישומים עתידיים עבור Riboglow-FLIM או מערכות מבוססות FLIM אחרות. הדגש מושם על בחירות עיצוב ניסוי, איסוף נתונים בלתי מוטה, ואתגרים נפוצים בהם נתקלים ברכישת וניתוח FLIM. בעוד שדווח בעבר על הדגמה של זיהוי RNA בתאים המשתמשים במבנים עם תגיגי ריבוגלו מועברים, אף אחד מהם לא מספק תהליך רכישה וניתוח שלב אחר שלב, במיוחד במערכות דו-ממדיות ותלת-ממדיות. יחד, עבודה זו מספקת משאב ליישום Riboglow-FLIM ככלי להדמיית RNA של תאים חיים.
פרוטוקול
1. הכנה וטיהור RNA
- הרכיבו את רכיבי תגובת השעתוק במבחנה בצינור מיקרוצנטריפוגה סטרילי בנפח 1.6 מ"ל כפי שמוגדר בהוראות היצרן לערכת סינתזת RNA במבחנה .
הערה: ה-RNA ששימש לניסויים אלו סונתז באמצעות ערכת השעתוק TranscriptAid T7 High Yield Transcription (Thermo Fisher Scientific). סינתזת RNA יכולה להתבצע באמצעות כל פרוטוקול מוכר, כולל ערכות מסחריות זמינות, כפי שהודגםקודם 17,20,21.- בקצרה, לשלב את בופר תגובת השעתוק, NTPs, תערובת אנזימים, DNA תבנית, ומים ללא נוקלאז לנפח כולל של 20 מיקרוליטר.
- הניחו את הצינור והתכולה בתנור של 37 מעלות צלזיוס למשך לפחות 4 שעות ועד הלילה. טהרו את ה-RNA המסונתז באמצעות עמודת ניקוי RNA כפי שמוגדר בהוראות היצרן עבור ערכת ניקוי ה-RNA.
הערה: פרוטוקול ניקוי ה-RNA ששימש לניסויים אלו היה Monarch RNA Cleanup Kit (New England Biolabs). ניקוי ה-RNA יכול להתבצע באמצעות כל פרוטוקול מבוסס שמוביל ל-RNA מטוהר (כאן, מוגדר על ידי ערכי A260/A230 ו-A260/A280 מעל 2.0), כולל ערכות מסחריות נוספות, כפי שהודגם קודם 17,20,21. כל שלבי הצנטריפוגה לניקוי עמודת ה-RNA הם למשך דקה אחת בעוצמה של 16,000 x g אלא אם צוין אחרת.- בקצרה, הביאו את הנפח הכולל של ה-RNA המסונתז ל-50 מיקרוליטר עם מים נטולי נוקלאז, ואז מוסיפים 100 מיקרוליטר של בופר קישור ואחריהם 150 מיקרוליטר של 100% אתנול.
- טען את כל 300 המיקרוליטר לעמודה והכנס אותו לצינור איסוף. צנטריפוגה את העמודה וזרקו את ה-flow-through.
- הוסיפו 500 מיקרוליטר של בופר שטיפה לעמודה ולצנטריפוגה. השליכו את ה-flow-through.
- חזור על שלב 1.2.3 פעם נוספת.
- הסר את צינור האיסוף מהעמודה וחבר צינור מיקרוצנטריפוגה סטרילי בנפח 1.6 מ"ל.
- הוסיפו 15 מיקרול מים ללא נוקלאז לעמוד לעמוד בטמפרטורת החדר למשך דקה.
- הפלטה באמצעות צנטריפוגה לצינור המיקרוצנטריפוגה והשליכה את העמודה.
- מדוד את הריכוז והטוהר של ה-RNA המטוהר באמצעות ספקטרופוטומטר מיקרו-נפח.
- ריקנו את הספקטרופוטומטר באמצעות 1 מיקרוליטר מים ללא נוקלאז.
- טעין 1 מיקרוליטר מדגימת RNA מטוהרת על בסיס הדגימה ומדידו.
- ריכוז וטוהר הדגימה, המצוינים על ידי ערכי A260/A230 ו-A260/A280.
- אחסן את ה-RNA המטוהר בטמפרטורה של -80°C.
2. גשושי ריבוגלו
הערה: הליך הסינתזה לכל גשושי הריבוגלו הכלולים בשיטה זו ניתן למצוא בספרות שפורסמהבעבר 21.
- אחסון מלאי גשושים (95 מיקרומ') במיקרוצינורות חסרי RNase ומוגני אור בטמפרטורה של -20°C כאשר אינם בשימוש.
- הפשרה מיד לפני השימוש מדוללת ל-4.5 מיקרומום בבופר RNA (100 mM KCl, 10 mM NaCl, 1 mM MgCl₂, 40 mM HEPES, pH 8.0) לניסויי דימות.
3. הכנת דגימה במבחנה
הערה: כל השלבים הכוללים RNA מטוהר צריכים להתבצע בסביבה נטולת RNase, כמו מכסה אדים שמטופל באופן קבוע ב-RNase denaturant.
- הכינו את תמיסת ה-in vitro של RNA וגלאי ריבולו.
- בצינור מיקרוצנטריפוגה נטול RNase, משלבים את דגימת ה-RNA המטוהרת עם גלאי ריבוגלו (Cbl-3xGly-ATTO590 או Cbl-5xGly-ATTO590) לריכוז סופי של 5.0 מיקרומום RNA וגשוש ריבוגלו 4.5 מיקרומום בבופר RNA (100 mM KCl, 10 mM NaCl, 1 mM MgCl2, 40 mM HEPES pH 8.0). מערבבים בעדינות פיפטות כדי להומוגן.
הערה: חשוב שיהיה ריכוז גבוה יותר של RNA מאשר ריבוגלו בתמיסה כדי להבטיח שהגשושית רוויה ב-RNA. אם ריכוזי ה-RNA או הגשוש מוטלים בספק, ייתכן שריכוז ה-RNA יוגדל או ירד את ריכוז הגשוש כדי להבטיח רוויה21.
- בצינור מיקרוצנטריפוגה נטול RNase, משלבים את דגימת ה-RNA המטוהרת עם גלאי ריבוגלו (Cbl-3xGly-ATTO590 או Cbl-5xGly-ATTO590) לריכוז סופי של 5.0 מיקרומום RNA וגשוש ריבוגלו 4.5 מיקרומום בבופר RNA (100 mM KCl, 10 mM NaCl, 1 mM MgCl2, 40 mM HEPES pH 8.0). מערבבים בעדינות פיפטות כדי להומוגן.
- עטוף את הצינור או מדף הצינורות בנייר אלומיניום ודוגר את התמיסה בטמפרטורת החדר לפחות 20 דקות. המשך להדמיית FLIM (שלב 6) מיד לאחר הדגירה.
4. תרבית תאים
הערה: גם קווי התאים HeLa וגם U-2 OS משמשים בניסויים אלה. פרוטוקולי הגידול והטעינה שלהם זהים. עבודת תרבית תאים צריכה להתבצע בארון בטיחות ביולוגית (BSC) עם טכניקות אספטיות סטנדרטיות המוגדרות על ידי תקנים ונהלים בסביבת מעבדת BSL-2.
- הפשרה מהירה של תאים קפואים בצינור קריוצינור בטמפרטורה של 37 מעלות צלזיוס והנחת מדיה של תרבית תאים באמבט מים בטמפרטורה של 37 מעלות צלזיוס.
- לצינור הקריו, הוסיפו נפח שווה של מדיום תרבית תאים מחומם. פיפט למעלה ולמטה בעדינות כדי להשעות את התאים.
- הוסיפו את תליית התא לצלחת תרבית רקמה בקוטר 90 מ"מ והביאו את הנפח הכולל של מדיום תרבית התאים ל-10 מ"ל. דגרו את התאים באינקובטור לח בטמפרטורה של 37 מעלות צלזיוס ו-5%CO2 לפחות במהלך הלילה כדי שהתאים יתחברו.
- הדמיינו את התאים תחת מיקרוסקופ אור כדי לקבוע את ההיצמדות וההתנגשות.
- כאשר המפגש מגיע ל-80–90%, תאי מעבר.
- שאפו את מדיום תרבית התאים מלוח 90 מ"מ. שטפו את התאים על ידי הוספת 4 מ"ל של מלח מפוזר פוספט (1 x PBS) והפזרתם על התאים על ידי נדנוד עדין של הצלחת מצד לצד.
- שואף את ה-PBS והוסיף 2 מ"ל של תגובת דיסוציאציאציה. החזירו את הפלטה לאינקובטור הלח ואפשרו לתאים להתנתק למשך 5–10 דקות.
- בזמן שהתאים בתהליך דגירה, יש להכין לפחות צלחת חדשה אחת לתאים על ידי הוספת 8 מ"ל של מדיום תרבית תאים. תייג את הלוחית בתאריך, קו תא ומספר מעבר.
- לאחר 5–10 דקות, הדמיינו ניתוק תחת מיקרוסקופ אור. תאים מנותקים אמורים לנוע במדיה.
- הסר את הלוח של התאים המנותקים והעבר נפח דומה של מדיום תרבית תאים טרייה לפלטה(ות). העברה בין 1–3 מ"ל מהתאים התלויים לצלחות החדשות בהתאם למטרות ניסוי עתידיות.
הערה: לקווי תאים שונים יש תקופות גדילה ורגישות שונות. עבור תאי HeLa ו-U-2 OS, העברת ~1 מ"ל של תליית תא מלוח שמתמזג לחלוטין לפלטה חדשה תיקח כ-4 ימים עד שתחזור לחיבור מלא.
- בהדמיית תאים, להעביר תאים לפלטות הדמיה בקוטר 35 מ"מ ולשטוף אותם כפי שתואר לעיל.
5. טעינת חרוזים עם גלאי ריבוגלו
- כאשר התאים מגיעים למפגש דימות מתאים, הסר את צלחת ההדמיה בקוטר 35 מ"מ מהאינקובטור ושאיפת המדיה. שטפו את התאים ב-1 מ"ל של 1X PBS כפי שתואר לעיל, עם תנועות T, ושאבו את ה-PBS.
- הוסף 3 מיקרוליטר של 30 מיקרומום ריבוגלו כשלוש טיפות שמפוזרות באופן שווה על התאים. הטה את הפלטה בסיבוב כדי לפזר את תמיסת הגשוש באופן שווה על פני שטח התא.
הערה: ריכוז גשושי ריבוגלו יכול לנוע בין 5 ל-30 מיקרומון. לניסויים המתוארים כאן, השתמשו במלאי של 30 מיקרומטר. עם זאת, 5 מיקרומום משמש בדרך כלל לדגימות תאים שעברו טרנספקציה. - הוסיפו שכבה דקה של חרוזי זכוכית לצלחת באמצעות מתקן חרוזים.
הערה: ודא שהחרוזים יוצרים שכבה אחת מעל התאים והימנעו מהוספת יותר מדי, שכן הם עלולים להיות קשים להסרה. - טפחו בחוזקה את תחתית הצלחת על משטח הספסל 8–10 פעמים כדי להקל על טעינת החרוזים22.
- חשפו במהירות את הפלטה והוסיפו מדיה חדשה לתרביות תאים. החזיר את הלוח לאינקובטור הלח למשך 10 דקות כדי לאפשר לגלאי להיכנס לתאים.
- אחרי 10 דקות, הסר את הפלטה ושאוף את מדיום תרבית התאים, תוך ניסיון להסיר כמה שיותר חרוזי זכוכית.
- שטוף את הצלחת שוב ושוב עם PBS כדי להסיר את שאר חרוזי הזכוכית.
- החזק את המנה בזווית, זרקו כמות קטנה של PBS בראש המנה ותנו לה לזרום למטה, תוך איסוף חרוזים בדרך. שאפתי את ה-PBS עם חרוזים בתחתית הצלחת. חזור על זה 3–5 פעמים לפי הצורך כדי להסיר את רוב החרוזים שנותרו.
הערה: אל תהיה חזק מדי עם זריקות PBS בשלב זה, שכן תאים דביקים עלולים להתנתק. אם נשארים כמה חרוזים אחרי כמה שטיפות כפייה, עדיף לנסות הדמיה איתם מאשר לשטוף בטעות יותר מדי תאים.
- החזק את המנה בזווית, זרקו כמות קטנה של PBS בראש המנה ותנו לה לזרום למטה, תוך איסוף חרוזים בדרך. שאפתי את ה-PBS עם חרוזים בתחתית הצלחת. חזור על זה 3–5 פעמים לפי הצורך כדי להסיר את רוב החרוזים שנותרו.
- הוסיפו 1 מ"ל מדיום דימות שקוף עם 10% FBS לצלחת ההדמיה ודגרו 10 דקות. המשך להדמיית FLIM (שלב 6). ההדמיה צריכה להתבצע תוך 3 שעות מהעמסה בחרוזים.
הערה: הליך טעינת החרוזים להכנסת מולקולות פלואורסצנטיות לתאי יונקים דבוקים הותאם מפרוטוקול שתואר במקום אחר22.
6. הדמיית FLIM
הערה: פרוטוקול זה מותאם לשימוש עם מיקרוסקופ קונפוקלי Nikon Ti2 Eclipse AX המצויד בחומרת FLIM/FCS ותוכנת NIS-Elements (ראו פרטים בטבלת החומרים).
- הפעלת המיקרוסקופ ברצף הבא: מיקרוסקופ סורקת לייזר קונפוקלי, יחידת בקרה במיקרוסקופ, ואז מערכת FLIM מבוססת ספירת פוטונים בודדים (TCSPC) במתאם זמן, הכוללת את יחידת השילוב בלייזר, גלאי הפוטומולטיפלייר וטיימר האירועים.
- לאחר הפעלת המיקרוסקופ, הפעל את המחשב השולחני ופתח את תוכנת המחשב.
- באפשרויות האתחול, בחר "AX with PicoQuant". חכה שתוכנת רכישת וניתוח תמונות תתחיל.
- לאחר ההפעלה, בחר "AX FLIM ו-FCS".
- התקן מיקרוסקופ לאיסוף נתוני פלואורסצנציה לאורך חייו.
- בחלק של משטח ה-AX:
- תוודא שגלבנו נבחר.
- הגדר ממוצע ל-1.
- הגדר את זמן השהייה ל-2.
- על מקטע כוח הלייזר:
- הורד את סליידר הלייזר הבודד נמוך, ל-3–4%.
- הגדר את סליידר All Lasers לאפס.
- על משטח TI2:
- תוודא ש-20x מטרה נבחרה.
- באזור הסריקה, בחר 512 x 512.
- תוודא שהגלאים הנכונים פועלים. דוגמה למערכת דו-לייזרית:
- גלאי 1 ללייזר 560 ננומטר.
- גלאי 2 ללייזר 640 ננומטר.
הערה: בהתאם לניסוי, ייתכן שישמשו לייזר אחד או יותר. לחץ קליק ימני על הגלאים כדי להדליק ולכבות אותם.
- הגדר את נתיב קובץ הנתונים.
- לך לתחתית החלק של הבקר, לחץ על "הגדרה".
- לך ללשונית PicoQuant/FLIM FCS .
- תחת "נתיב Workspace" לחץ על סמל התיקייה מימין.
- בחר מיקום וצור תיקייה חדשה לניסויים של היום.
- סגור את החלק של ההגדרות.
- בחלק של משטח ה-AX:
- בחר "חי" עד שחלון רכישת התמונה מופיע, ואז בחר שוב "חי" כדי לעצור את איסוף הפוטונים.
- התחל להגדיר חלונות איסוף נתונים ב-FLIM.
- לחץ קליק ימני על חלון התמונה החיה ולחץ על "תוסף PicoQuant".
- אפשר:
- הצג עקומת דעיכה
- מעקב זמן ההצגה
- הצג סטטיסטיקות FLIM
הערה: יש ללחוץ קליק ימני על התמונה החיה בכל פעם עבור שלושת החלונות הללו.
- המשיכו לתת-סעיף הפרוטוקול המתאים בהתאם לסוג הדגימה המצולם.
7. איסוף נתונים במבחנה
- טען את דגימת FLIM במבחנה .
- קבל משטח החלקה שחור וטופס כיסוי. הניחו כיסוי על משטח ההחלקה.
- הנח טיפה של 5–20 מיקרוליטר של דגימת המבחנה על משטח המכסה.
- טען את משטח ההחלקה על שלב המיקרוסקופ.
הערה: טיפות גדולות יותר ~20 מיקרוליטר מועדפות על פני טיפות קטנות כי הן מתאדות יותר זמן. ניתן להאט את האידוי עוד יותר על ידי כיסוי הטיפה בכיסוי קטן או בעצם בצורת דומה. - באמצעות הג'ויסטיק, נווט ויזואלית את המטרה למרכז הטיפה.
- בחר "בשידור חי" וצפה במשטח הזמן. הוא יציג את מספר הפוטונים שמתקבלים על ידי הגלאים בזמן נתון.
- מצא את גובה Z הנכון של טיפת הדגימה.
- המשך לכוונן את גובה ה-Z עד שאות ה-time-trace יגיע למקסימום.
- התחל להגדיל את עוצמת הלייזר תוך כדי צפייה בקצב הספירה מתחת לסליידר הגלאי. ספירת מטרות לשנייה (CPS) משתנה, אך עדיף לרכוש 1,000-10,000 פוטונים לפריים.
- תתחיל להזיז את גובה ה-Z למטה ואז למעלה כדי לראות שוב את מסלול הזמן המקסימלי. זה מייצג את ממשק הסלייד-טיפה.
- תסתכל על גובה ה-Z המוחלט בפינה הימנית התחתונה ותגדיל אותו ~20 מיקרומטר כדי להזיז את המיקוד למרכז הנפילה (drop). אות מעקב הזמן אמור לרדת מעט ואז לקיפאון.
הערה: כאשר גובה ה-Z נכון, העלאה או הקטנה קלה של גובה ה-z לא תשנה באופן משמעותי את קצב הזמן או את הצבע הממוצע של התמונה החיה. בנוסף, ניתן למצוא את מסגרת הטיפה על ידי בחירת כפתור "עכבר XY" בראש החלון החי והזזת התמונה.
- קבע הגדרות רכישה.
- תסתכל על עקומת הדעיכה ותראה באיזה פוטונים הוא מגיע לשיא. זה מייצג את סך כל הפוטונים שנרכשו בשלושה מסגרות. באמצעות מספר זה, קבעו כמה פריימים נדרשים לכל רכישה. לניתוח FLIM במבחנה , רצויים 10 עד5 פוטונים בסך הכל. 10–15 פריימים לכל רכישה אמורים להספיק.
- בהתבסס על מספר הפריימים שנקבע, הגדר את ערך ה"לכידה".
- לכל לכידה, עצרו את התמונה החיה, בחרו ב"לכידה", אפשרו לאסוף את הנתונים, ואז לחצו שוב על "חי" והשתמשו בכפתור "עכבר XY" כדי לעבור למקום חדש.
- חזור על שלב 7.5 עבור שכפולים טכניים עד שיאספו מספיק נתונים.
הערה: כל לכידה בודדת תוביל בסופו של דבר לערך פלואורסצנטי אחד לכל אורך החיים עבור אותה דגימה. כדי לאסוף חמש עשרה נקודות נתונים לאורך החיים, השלים את שלב 7.5 חמש עשרה פעמים בסך הכל. - לאחר איסוף כל הנתונים, סגרו תוכנות לאיסוף וניתוח תמונות וייצאו נתוני מיקרוסקופיה פלואורסצנטית לכל החיים (FLIM).
- פתח את סייר הקבצים ונווט למיקום שהוגדר מראש עבור הנתונים.
הערה: כל סשן איסוף נתוני FLIM יוביל לתיקיית .sptw אחת, שבה ניתן למצוא את כל הנתונים מהמפגש הזה. NIS Elements נותן את שמות התיקייה אוטומטית לפי תאריך הניסוי, והרכישות הבודדות יינתנו לפי זמן הרכישה. - ייצא את תיקיית .sptw והמשיך לעיבוד FLIM.
- פתח את סייר הקבצים ונווט למיקום שהוגדר מראש עבור הנתונים.
8. איסוף נתוני תאים דו-ממדיים
- אם זה לא כבר בוצע, הגדר את סידור הלייזר הנכון לניסוי התאי.
- גש ל"הגדרות ניסוי" בפינה הימנית העליונה של הדף, ליד הלייזרים.
- לחץ על "הוסף" ליד תיבת הצבע הרב-ערוצית.
- הוסף צבעים רצויים.
הערה: רוב גשושי הריבוגלו משתמשים בפלואורופור ATTO 590, ולכן יש להוסיף צבע זה ברוב ניסויי הריבוגלו. - לחץ על מצב מומחה.
- כאן, כוון איזה גלאי מקבל אילו ספקטרום פליטה. באופן אידיאלי, ספקטרום פליטה עם גירור/פליטה חופפת צריך להיות מנותב לגלאים שונים. גלאי GaAsP מועדפים על פני גלאי MA, שכן גלאי MA אינם ניתנים לכיוונון.
- משמאל, שנה את סדר המעבר כדי למזער קול חוצה בין צבעים עם עירוץ/פליטה חופפים.
- שמור את ההגדרות ושם את תצורת הלייזר החדשה. בחר אותו לניסוי.
הערה: שלב זה חייב להתבצע רק פעם אחת לכל פרופיל, ויש לשמור אותו בפרופיל המשתמש לניסויים עתידיים.
- פתח את חלון הסקירה של XYZ על ידי ניווט ל-View > Acquisition Controls > XYZ Overview. תצוגה זו מציגה היכן על הבמה כל תמונה מצולמת ועוזרת למנוע כפילויות מקריות.
- המשך לטעינת דגימות.
- לפני טעינת צלחת ההדמיה, ודאו שהתווסף כתם גרעיני של תא חי. הצבע דורש ~30 שניות לחדור לתאים ומאפשר לראות את הגרעינים לראייה.
- הנח את צלחת ההדמיה על המיקרוסקופ. דחוף את הצלחת כמה שיותר למטה שמאלה בשלב המיקרוסקופ. הדביקו את הדגימה לבמה אם משתמשים במטרות שאינן אוויר כדי למנוע הסחפת xy.
הערה: הדבקה של הדגימה לשלב המיקרוסקופ היא הכרחית כדי למנוע מהצלחת לזוז כאשר משתמשים במטרות שאינן אוויר. - עבור לערוץ ה-DAPI ומתחיל להעלות את גובה ה-Z באמצעות הכפתור בצד הבקר. המשיכו לאט עד שגרעיני התאים מתבהרים.
- כוון את ה"גזר" בבקר המיקרוסקופ כדי לכוון את הרגישות של כפתור הגובה Z.
- אם התאים אינם נראים לעין, ייתכן שיהיה צורך להתאים את קואורדינטות XY לאזור של לוח עם גרעינים.
- הגדר את הפוקוס האוטומטי של PFS ל"הפעלה" בלוח הבקרה של המיקרוסקופ.
- בצד ימין של לוח ה-AX, בחר את זכוכית המגדלת ליד כפתור ה-PFS. המיקרוסקופ יתחיל להתאים את עצמו כדי לנרמל את גובה ה-Z. לאחר סיום, כפתור ה-PFS אמור להידלק ולכתוב "בפוקוס" כדי להראות שה-PFS דלוק.
הערה: מערכת המיקוד המושלם (PFS) ממזערת את סטיית ה-Z הנגרמת מתנועת שלב XY או ניסויים ממושכים. כאשר PFS נבחר, השתמש ב-2 מהירויות לכל התאמת גובה Z כי ה-PFS ינטרל אוטומטית התאמות קטנות יותר.
- בצד ימין של לוח ה-AX, בחר את זכוכית המגדלת ליד כפתור ה-PFS. המיקרוסקופ יתחיל להתאים את עצמו כדי לנרמל את גובה ה-Z. לאחר סיום, כפתור ה-PFS אמור להידלק ולכתוב "בפוקוס" כדי להראות שה-PFS דלוק.
- לפני תחילת איסוף נתוני תאים, ודאו שגלאי AX משמש לחיפוש תאים, ולא לגלאי FLIM/FCS.
- בעת חיפוש תאים, השתמשו בערוץ DAPI כדי למצוא אזורים של תאים, ואז עברו לערוץ ATTO 590 כדי למצוא תאים שהיו טעונים ביעילות באמצעות חרוזים.
הערה: יעילות טעינת החרוזים נמוכה משמעותית (אצלנו, ~30% תאים טעונים בחרוזים) לעומת יעילות צביעת גרעינית, ולכן לא כל התאים עם גרעינים פלואורסצנטיים יכילו ATTO 590. - לאחר זיהוי תא, לחצו עליו פעמיים כדי למרכז אותו במסגרת. חלופה נוספת היא ללחוץ קליק ימני על חלון הרכישה ולחץ על "הזז נקודה זו למרכז".
- כאשר התא ממורכז, עברו ל"AX FLIM ו-FCS".
- בפינה הימנית התחתונה של המסך, ודא ש"512 x 512" נבחר.
- בחלון הקטן בפינה הימנית התחתונה, כוון את המסגרת כך שתתאים לתא על ידי לחיצה וגרירת הפינות. תן למסגרת החדשה להפוך לאדום. קליק ימני בתוך המסגרת או בחר "חי" עד שהמסגרת הופכת לירוקה, מה שמציין שההתאמה עברה.
- כוון את מספר הלכידות לערך הרצוי.
הערה: לפחות 10-4 פוטונים בסך הכל אידיאליים לניסויים תאיים. בניסויים תת-תאיים, 10 או5 פוטונים כוללים הם אידיאליים, שכן אחוז גדול של פוטונים יוחרג כאשר מוגדר אזור העניין (ROI). עבור מסגרת בגודל 512 x 512, ~30 פריימים יספיקו בדרך כלל לרכישה סלולרית. רכישת יותר או פחות לכידות תעלה את הרזולוציה או את מהירות הלכידה, בהתאמה. - בחר "לכידה". חלון חדש אמור להופיע עם הלכידה. תיבת התקדמות הלכידה בצד ימין של המסך אמורה להופיע ליד תיבת קלט הלכידה.
- בינתיים, תוכנת ניתוח מיקרוסקופיית פלואורסצנציה לכל החיים (FLIM) פתוחה ולנווט לנתיב הקובץ הנכון. רכישות FLIM ימלאו אוטומטית את חלון תוכנת ניתוח FLIM, וניתן לשנות את שמותיהם בעת הרכישה.
- לאחר סיום הלכידה, חזור לגלאי AX ובחר "Live" כדי לחפש תא חדש. גודל חלון AX FLIM/FCS ניתן לכוונון בכל עת כדי להתאים לתאים גדולים או קטנים יותר.
- המשך לצבור תאים חדשים בתוך תקופת ההדמיה של 3 שעות.
- בסיום, ייצא את קובץ .sptw שנוצר על ידי ביצוע שלב 7 ב"איסוף נתונים מבחבתי ".
- המשיכו לעיבוד FLIM לאחר סיום הטיפול.
9. 3D איסוף נתוני FLIM סלולרי ב-Z-Stack
- הגדרת לייזר מלאה, התאמת גובה Z, וחיפוש תאים כפי שמתואר באיסוף נתוני תאים דו-ממדיים, שלבים 8.1 - 8.12.
- בראש אזור ההגדרות, עבור ללשונית "רכישת ND".
- לחץ על תיבת הסימון "XY", אמורה להופיע טבלה.
- אם יש קואורדינטות בטבלה, לחץ על "ניקוי ערכים" בפינה הימנית העליונה של הטבלה.
- לחץ על "הוסף" בראש הטבלה כדי להוסיף את התא לטבלה.
- זה אמור למלא את קואורדינטות XY הנוכחיות של השלב, ואת ערך Z/ערך PFS.
- לחץ על תיבת הסימון "Z" מעל הטבלה.
- באמצעות בקר הלכידה ומיקרוסקופ החי, גלול למטה לתחתית התא ליד הלוח. לאחר שנמצא תחתית התא, לחץ על כפתור "תחתון" הצהוב ליד הקובייה כדי להשתמש בגובה Z הזה כתחתית התא.
- חזור על התהליך עם החלק העליון של התא, תוך לחיצה על כפתור "עליון" לאחר ניווט לראש התא באמצעות בקר המיקרוסקופ.
- מתחת לקובייה, לחצו על הכפתור ליד תיבת "צעד". זה ימלא את תיבת השלבים במספר הצעדים המומלץ לגובה Z המוגדר.
הערה: הגדלת מספר השלבים תגדיל את הרזולוציה הסופית בציר Z וכן את זמן הרכישה. כל פרוסה של התא חייבת להיות גם ניתוח בנפרד כדי לקבוע את נוף חיי התא כולו, ולכן זמן ניתוח התמונה הזה צריך להילקח בחשבון גם כאשר מחליטים על מספר הצעדים לכל תא. ראו "תת-קטע: עיבוד FLIM תאי" לפרטים מלאים על תהליך התאמת FLIM לפני קבלת החלטה על מספר השלבים לניסוי Z-stack. - בחזרה בלשונית "רכישה", שנה את מספר הפריימים לכמחצית מהכמות הרגילה.
הערה: זה בעיקר כדי לחסוך זמן, שכן איכות כל פרוסת Z-stack בודדת פחות חשובה לאיכות התמונה הסופית. כדי לשמור על איכות תמונה קפדנית, בחר מספר רגיל או אפילו גבוה יותר של לכידות לכל פרוסה. זה יאריך את זמן הרכישה. - חזרה לטבלת "רכישת ND", בחר "Run Now".
- אפשר למיקרוסקופ לקלוט את כל פרוסות התא; זמן הרכישה משתנה בהתאם למספר הפרוסות והלכידות שנבחרו לכל פרוסה.
- לאחר איסוף התמונה, שמור אותה כקובץ .nd2 ודמיין אותה בתלת-ממד באמצעות כפתור "הצג תצוגת ווליום" בראש חלון הרכישה.
- אם יש צורך לצלם תמונות קונפוקליות עבור ערימת Z התאית, יש לצלם תמונה זהה של התא באמצעות גלאי AX.
- עבור לגלאי AX על ידי בחירת "AX" קרוב לראש לוח הבקרה.
- בחזרה בטבלת "רכישת ND", בחר "רץ עכשיו". התמונה הקונפוקלית תיקח מעט מאוד זמן להיראות בהשוואה לתמונת FLIM.
- בסיום, ייצא את קבצי .sptw שנוצרו על ידי ביצוע שלב 7 בסעיף "איסוף נתוני FLIM במבחנה ".
- ניתן לייצא את תמונת הקונפוקלי כקובץ .nd2 ולשמור אותה במקום ידוע במחשב.
- המשך ל"עיבוד FLIM" לאחר סיומו.
10. עיבוד FLIM
- עיבוד FLIM כללי/במבחנה
הערה: לשינויים בפרוטוקול הספציפיים לנתוני FLIM תאיים, כגון בחירת ROIs, ראו עיבוד FLIM תאי (ראו שלב 10.2).- השיק תוכנת ניתוח FLIM.
הערה: אם מפתח תוכנת ניתוח FLIM מחובר לאותו מחשב כמו המיקרוסקופ, המיקרוסקופ חייב להיות מופעל במלואו כדי שהתוכנה תוכל לפעול. אם מפתח התוכנה נמצא במחשב נפרד, התוכנה עשויה להציג את הודעת השגיאה "אתחול המכשיר נכשל. לא מצליח להתחבר ל-TCSPC", שניתן לדחות בבטחה. - פתח את קובץ FLIM .sptw בתוכנת ניתוח FLIM באמצעות אחת מהשיטות הבאות:
- בראש המסך, עבור לקובץ > Open Workspace > [בחר מיקום קובץ .sptw].
- לחץ וגרר את קובץ .sptw מהמיקום השמור שלו והניח אותו לחלון תוכנת ניתוח FLIM בקופסה הלבנה הגדולה משמאל לחלון.
הערה: כדי שתוכנת ניתוח FLIM תוכל לזהות תיקיות FLIM, הן חייבות להסתיים ב-".sptw" ולהכיל קובץ WSLogfile. ודא שמזהים אלה לא מוסרים בעת שינוי שמות או העברת תיקיות נתונים. כאשר נטענים בהצלחה, ריבועים ירוקים קטנים יתפסו את החלון משמאל, וייצגו רכישת נתונים בודדת.
- קליק אחד על אחת הרכישות הירוקות.
- נווט לניתוח > Imaging > FLIM ובחר "התחל". קובץ ה-FLIM יתחיל להיטען.
- לאחר הטעינה, ניתן להסיר את סרגל הסקיילבר שנוצר אוטומטית על ידי לחיצה ימנית על חלון הדגימה והסרת הסימון של האפשרות "הצג סרגל סקייל".
- בחר את אפשרויות הנפתח הבאות בלשונית התאמת דעיכה:
- מודל התאמה: רקונבולוציה N-אקספוננציאלית
- התפוררות: התפוררות כוללת
- IRF: IRF מחושב
הערה: תמונות FLIM במבחנה הן בדרך כלל הומוגניות ואינן דורשות תשואה (ROI). עם זאת, ייתכן שיש תכונות תמונה לא רצויות שיש להשמיט. אם כן, הגדר ROI על ידי לחיצה ימנית על חלון הדוגמה ובחירת אחת מאפשרויות ה-ROI השונות. לחץ והחזק כדי להגדיר אזור. הערכים המודרים צריכים להפוך למונוכרומטיים, בעוד שהערכים שנבחרו יישארו צבעוניים. IRF מחושב משמש לעקביות; עם זאת, IRF שנמדד עשוי לספק דיוק משופר לתנאי ניסוי מסוימים ויש לשקול אותו כאשר זמין.17.
- בתחתית, בחרו בכפתור הכתום "התאמה ראשונית". התוכנה תחשב קו התאמה מיטבית ותצייר אותו בשחור לצד נתוני עקומת הדעיכה הירוקה.
- נתח את ההתאמה והשאריות שנוצרו וקבע את איכות ההתאמה.
- מתחת לעקומת הדעיכה, הסתכל על השאריות שנוצרו וקבע את איכות ההתאמה. שאריות אקראיות דמויי רעש מצביעות על התאמה איכותית, בעוד שתכונות קו מובחנות ומדרונות חלקים מצביעים על התאמה לקויה.
- ערך χ2 להערכת איכות ההתאמה נמצא בפינה הימנית התחתונה של שולחן ההתאמה. ה-χ2 מתקרב ל-1 ככל שההתאמה משתפרת.
הערה: תרשים השאריות הוא פשוט ייצוג ליניארי של החפיפה בין עקומת הדעיכה המחושבת (קו שחור) לעקומת הדעיכה הנמדדת (ירוק). משמעות הדבר היא שניתן לשפוט את איכות ההתאמה על ידי בדיקת ההתאמה בין שתי הקימורים. פרטים נוספים על התאמת נתוני FLIM ניתנים בפרסום עדכני23.
- התאימו את מספר הפרמטרים כדי לשפר את איכות ההתאמה לפי הצורך.
- ליד "פרמטרי מודל", הגדל את ערך n ב-1 ובחר "התאמה התחלתית". העקומה החדשה תחושב, ויוצגו השאריות החדשות וערך χ2 .
- הערך את איכות ההתאמה החדשה וברר אם נדרשים פרמטרים נוספים.
- חזור על השלבים 10.1.9.1. ל-10.1.9.2. עד שהדעיכה המדומה מגיעה לאיכות אופטימלית.
הערה: יש למזער את מספר הפרמטרים תוך השגת איכות ההתאמה המרבית האפשרית. אם שני פרמטרים מייצרים איכויות התאמה כמעט זהות, יש להשתמש במספר הפרמטרים הנמוך יותר. תיאורטית, מספר פרמטרי המודל תואם למספר המינים המייצרים חיים במדגם. בפועל, מספר הפרמטרים האידיאלי גדל ככל שהמורכבות של המערכת המוצגת עליה. - לאחר קביעת מספר הפרמטרים הסופי, ניתן לרשום את אורך החיים המשוקלל שלτ AvAmp (τ AvAmp [ns]) מטבלת התאמת דעיכה.
הערה: אמפליטודה ממוצעת של טאו (τAvAmp) ועוצמת ממוצעת של טאו (τAvInt) הן שתיהן מדדים של אורך החיים הפלואורסצנטי הממוצע של דגימה. עם זאת, החישובים המשמשים לקביעת כל ערך שונים, והשניים אינם ניתנים להחלפה. באופן כללי, τAvAmp הוא מדד מדויק יותר למערכות ביולוגיות23. - כדי להשיג את תמונת ה-FLIM המותאמת של הדגימה, לבצע חיסור רקע באמצעות הנתונים המותאמים ולבצע התאמת FLIM.
- עבור תיבות הסימון הלבנות בטבלת התאמת דעיכה, הסר את כל התיבות פרט לתיבות τn[ns]. מספר הקופסאות τn[ns] יתאים למספר פרמטרי ההתאמה שנקבעו.
- שנה את ערך ה-BkgrDec[Cnts] לאפס.
- מייד משמאל לחלון הדגימה, בחר "FLIM Fit". התוכנה תתחיל להתאים לדגימה.
- לאחר ההתאמה, ניתן לכוונן את קנה המידה המזויפ של הצבעים והגדרות התצוגה בעוצמה על ידי שינוי המיתוג מימין לחלון הדגימה.
- ניתן לייצא את תמונת הדוגמה כ-Bitmap לעיבוד תמונה נוסף על ידי לחיצה ימנית > ייצוא > Bitmap או Bitmap עם Colorscale.
- השיק תוכנת ניתוח FLIM.
- עיבוד FLIM סלולרי
- שלבים מלאים 10.1.1 - 10.1.5 בעיבוד FLIM כללי/במבחנה .
- הגדר ROI סלולרי על ידי לחיצה ימנית בחלון התצוגה לדוגמה ובחירת אחת מאפשרויות שרטוט ה-ROI.
הערה: בשל צורתם הלא סדירה, השימוש באפשרות התשואה החופשית הוא לעיתים קרובות הטוב ביותר להגדרת תאים. אזור מ-ROI עשוי להיפסל על ידי החזקת CTRL בעת הגדרת אזור. ניתן להוסיף שטח נוסף ל-ROI שכבר נבחר על ידי החזקת SHIFT. בעת ניתוח תאים תת-תאיים, כתמים פלואורסצנטיים הנראים בתמונות קונפוקליות עשויים שלא להיות נראים בתמונת FLIM הבאה. במצבים אלו, מומלץ להשתמש בתמונה הקונפוקלית כהפניה לציור ROI בתמונת FLIM. - בחר את אפשרויות הנפתח הבאות בלשונית התאמת דעיכה:
- מודל התאמה: רקונבולוציה N-אקספוננציאלית
- התפוררות: החזר על ההשקעה
- IRF: IRF מחושב
- השלימו את שאר ההליך בעיבוד FLIM כללי/מבחבתי, שלבים 7 עד 13.
תוצאות
סקירה גרפית מלאה של תהליך הניסוי ניתן למצוא באיור 1. כדי למזער הטיה ניסויית, ניתן לנתח מערכי נתונים בעיוורון. לדוגמה למטרה זו, כל זהויות המדגם נשמרו מוסתרות מהחוקרים במהלך איסוף ועיבוד הנתונים. לכן, קבוצות ניסוי מסומנות לפי המזהה שהוקצה להן (קבוצה A, קבוצה B וכו'), וזהותיהן האמיתיות מוגדרות בכיתובים בטקסט ובאיור.
לאחר טיהור תג A של ה-RNA, נמדדו חיי הפלואורסצנציה במבחנה של שני גשושי ריבולו, Cbl-3xGly-ATTO590 (3xGly) ו-Cbl-5xGly-ATTO590 (5xGly), בנוכחות ובהיעדר תג ה-RNA A. הגשושים 3xGly ו-5xGly זהים למעט מספר החזרות המונומריות של גליצין במקטעי הקישור שלהם, שלושה עבור 3xGly וחמש עבור 5xGly (איור 2D). אורך החיים של פלואורסצנציה במבחנה נאסף ונותח בשיטות שתוארו לעיל, והדעיכה הכוללת נותחה ללא בחירת ROI (איור 2E-2G). לאחר רקונבולוציה n-אקספוננציאלית, ערכי τAvAmp הופקו וצוירו על ידי קבוצת ניסוי (איור 3B). חלונות רכישת FLIM ייצוגיים עם סולמות צבע שגויים מנורמלים נוצרו עבור כל קבוצה והוכחו כמתאימים לערכיΤ AvAmp שנאספו בהתאם לסוג המדגם הספציפי שלהם (איור 3A ו-3B). כמצופה, דגימות חיים במבחנה המכילות את תג ה-RNA A (קבוצות B ו-C) הציגו ערכי חיים פלואורסצנטיים גבוהים משמעותית לעומת דגימות ללא תג RNA A (קבוצות A ו-D). עקומות דעיכה מייצגות לכל קבוצת ניסוי מראות כי נוכחות תג ה-RNA A מאריכה את אורך החיים המופק במבחנה (איור 3C). עבור דגימות ללא תג RNA A, עקומות הדעיכה שלהן מוזזות שמאלה, מה שמעיד על ערכי חיים ממוצעים קצרים יותר בהשוואה לדגימות עם תג ה-RNA A.
כדי לחקור את חיי הפלואורסצנציה בתאים חיים, בוצעה טעינת חרוזים של תאי HeLa דביקים כפי שתואר לעיל באמצעות גשושי ריבוגלו 3xGly ו-5xGly (איור 4A). ניתוח FLIM שימש לקביעת האם הגשואים השונים של ריבוגלו הפיקו אותות חיים ייחודיים בתאים חיים. תאים נבחרו למדידת FLIM בהתבסס על נוכחות גלאי ריבוגלו טעון ובריאות התא הכללית. התאים נבחרו בהתבסס על טעינת גלאי מאושרת ומורפולוגיה תקינה לפני ניתוח החיים, ללא תלות בתוצאה הפלואורסצנטית לאורך כל החיים. נתוני FLIM שנאספו נותחו באמצעות ROIs כדי להגביל אותות פלואורסצנציה מחוץ למטרה (איור 2H, איור 4B). התוצאות הראו כי תוחלת החיים הפלואורסצנטית של תאים טעונים ב-3xGly (קבוצה E) הייתה נמוכה משמעותית מאלו הטעונים ב-5xGly (קבוצה F, איור 4D). מגמה זו ניתנת להמחשה נוספת דרך עקומות דעיכה מייצגות של שתי קבוצות המדגם, שבהן תא טעון ב-3xGly יש לו עקומת דעיכה מוסטת שמאלה לעומת התא הטעון ב-5xGly, מה שמעיד על אורך חיים ממוצע פלואורסצנציה נמוך יותר (איור 4C). תוצאות אלו מדגימות את השימושיות של הפרוטוקולים המתוארים בהפקת חיי תאי של גשושי ריבוגלו מתמונות תאיות דו-ממדיות.
לאחר מכן שאפתנו את Riboglow-FLIM במחלקות תת-תאיות. לדוגמה, בחרנו באותות FLIM גרעיניים לעומת ציטוזוליים. אורך החיים של גרעיני התאים נאסף והושווה לאורך החיים הציטוזולי כדי לחקור שינויים באורך החיים בין תאים (איור 5). תמונות קונפוקליות של תאים עם כתמים גרעיניים כחולים נאספו לצד תמונות FLIM ושימשו לקביעת ROI גרעיני וציטוזול (איור 2J, איור 5C). ניתוח FLIM של גרעיני תאים וציטוזולים טעונים ב-3xGly ו-5xGly חשף הבדל משמעותי לאורך החיים בין התאים התת-תאיים בשתי הקבוצות (איור 5F). בהתאם לתצפיות קודמות, גרעין התאים הטעונים בגלאי ריבוגלו מחזיק באורך חיים פלואורסצנטי גבוה יותר באופן עקבי מהציטוזול של אותו תא. אורך החיים הגרעיני היה, בממוצע, גבוה ב-0.18 ו-0.13 ננו-שניות מהציטוזול עבור 3xGly ו-5xGly, בהתאמה. חשוב לציין שחלון רכישת קנה מידה צבע שגוי, עקומות דעיכה, וערכיAvAmp של τ שהופקו כולם מראים את אותו מגמת חיים פלואורסצנטית (איור 5C-איור 5F). הבדלים אלו בין חיי הגרעין לחיי הציטוזולים היו קטנים אך זוהו בעקביות דרך תהליך ניתוח הנתונים החזק שלנו.
כדי להדגים את תועלת FLIM במערכות מורכבות יותר ויותר, נאספו ונותחו מחסניות Z תלת-ממדיות תאיות. בסך הכול ארבעה תאים צוירו בתלת-ממד באמצעות פרוסות Z-stack, כאשר מספר הפרוסות נע בין 10–15 לכל תא. לכל פרוסה תאית נאספו ROIs של הגרעין והציטוזול, וערכיה-AvAmp שהופקו עבור כל הפרוסות צוירו ונותחו באמצעות מבחן t זוגי (איור 5A ו-5B , 5G). תוצאות כל הניסויים הראו כי לא היה הבדל משמעותי בין חיי הגרעין לציטוזול בתאים אלו. ייתכן שזה נובע מהפחתת ספירת הפוטונים לכל פרוסת Z וגודל מדגם מוגבל, מה שיכול להפחית את עוצמת החשמל הסטטיסטית ואת הרזולוציה לאורך החיים בניתוח תלת-ממדי. נתונים אלו מדגישים את חשיבות גודל המדגם וספירת הפוטונים באיסוף נתוני FLIM, כאשר ניתוחים מרובים של תאים עם ספירות פוטונים גבוהות יותר בכל לכידה חושפים הבדלים לאורך חיים שאינם נראים בניסויים חד-תאיים עם פוטונים נמוכים (איור 5F ו-5G).
יחד, תוצאות אלו מדגימות את השימושיות של הפרוטוקול המתואר באיסוף וניתוח נתוני FLIM המיוצרים על ידי מערכת ריבוגלו בהקשרים ביומולקולריים רלוונטיים רבים.
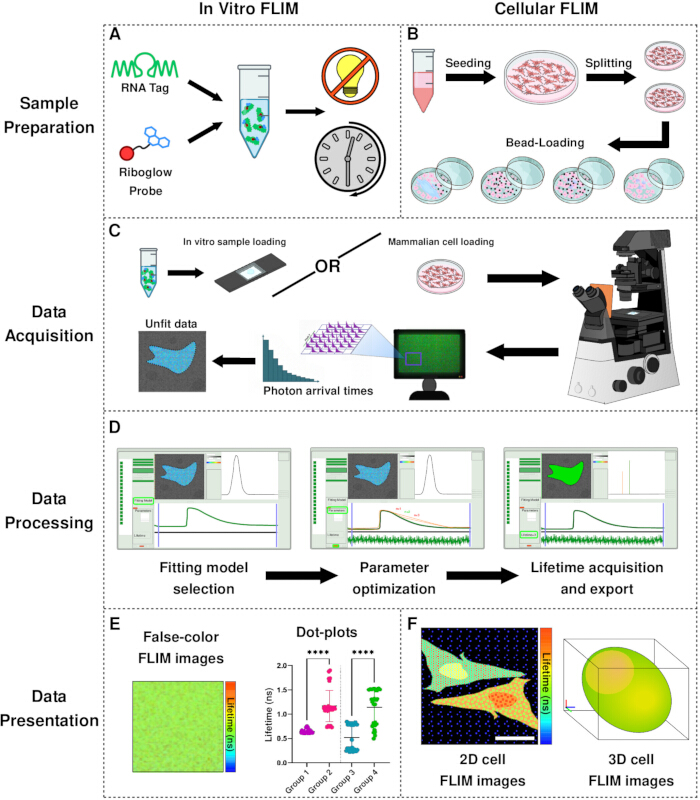
איור 1: סקירה של תהליך עבודה ניסיוני. A-B) תהליך הכנת דגימות עבור דגימות במבחנה (A) ותאי יונקים (B). ג) תהליך רכישת נתונים ב-FLIM. ד) תהליך עיבוד נתונים ב-FLIM. הנתונים שנאספו מותאמים באמצעות רקונבולוציה n-אקספוננציאלית, נקבע מספר פרמטרי ההתאמה לכל רכישה, וערך החיים הסופי נקבע ומיוצא. E-F) תצוגת נתוני FLIM. נתוני חוץ-גופית (E) מוצגים כתמונות FLIM בצבע שקרי או כתרשימי נקודות לכל החיים, ונתוני תאים סלולריים (F) מוצגים כתמונות FLIM דו-ממדיות או תלת-ממדיות של תאים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
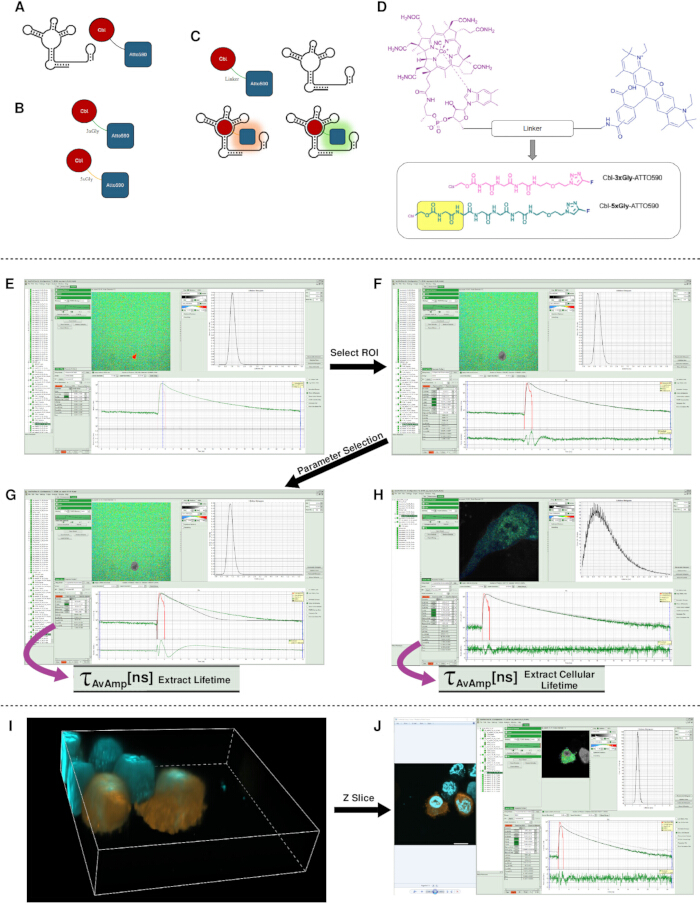
איור 2: פלטפורמת Riboglow, סדרת Linker ותהליך התאמת FLIM. A-B) קריקטורה של גשושי ריבוגלו ותג RNA A. ג) המחשה של קישור פרוב ריבוגלו לתג האפטמר של ה-RNA (תג A), מה שמוביל להגברת עוצמת הפלואורסצנציה ולמשך החיים בעת היווצרות מורכבים. ד) סדרת Riboglow linker למחקר זה. Cbl (שזיף) מקושר קוולנטית לפלואורופור (כחול) באמצעות קישור כימי משתנה. 5xGly מכיל שני שאריות גליצין נוספות, כפי שמודגשים בצהוב. E-J) עיבוד נתוני FLIM באמצעות SymPhoTime 64. E-G) נתוני FLIM מיובאים ל-SymPhoTime 64 (E). נבחר אזור נקי של עניין (ROI) (F), ועקומות דעיכה מותאמות לאחר מכן באמצעות מודל רקונבולוציה n-אקספוננציאלי (G). ההתאמה האופטימלית משמשת לקבלת אורך החיים הממוצע המשוקלל במשרעת (τAvAmp). H) ניתוח FLIM תאי דו-ממדי של ה-3xGly המנותק בתאי U-2 OS, המראה התאמה ל-n = 3. I) הדמיית נפח תלת-ממדי של תאי HeLa מסומנים ב-5xGly ו-DAPI. J) תהליך Z-stack לניתוח FLIM של גרעין לעומת ציטוזול, המדגים כיצד פרוסות Z קונפוקליות מתאימות מנחות מיקום ROI מדויק להתאמת חיים ספציפית לתא. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
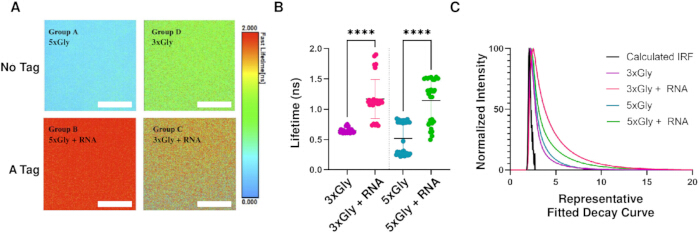
איור 3: הערכת חיי פלואורסצנציה של שני וריאנטים של גלאי במבחנה +/- RNA. א) הדמיה כמותית של גשושי ריבוגלו באמצעות מיקרוסקופ דימות פלואורסצנטי לכל החיים (FLIM) במבחנה בנוכחות או בהיעדר תג ה-RNA A. פס סולם = 50 מיקרון. B) צייר τ ערכי AvAmp עבור דגימות במבחנה של 3xGly ו-5xGly, עם ובלי תג RNA A. כל נקודה מייצגת רכישה אחת של FLIM. פסי השגיאה מייצגים ממוצע ו-SD. ANOVA חד-כיווני עם TUKI HSD פוסט-הוק מגלה הבדלים משמעותיים באורך החיים (****p < 0.0001). ג) עקומות דעיכה מייצגות במבחנה עבור פרובים של 5xGly ו-3xGly עם ובלי RNA-A. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
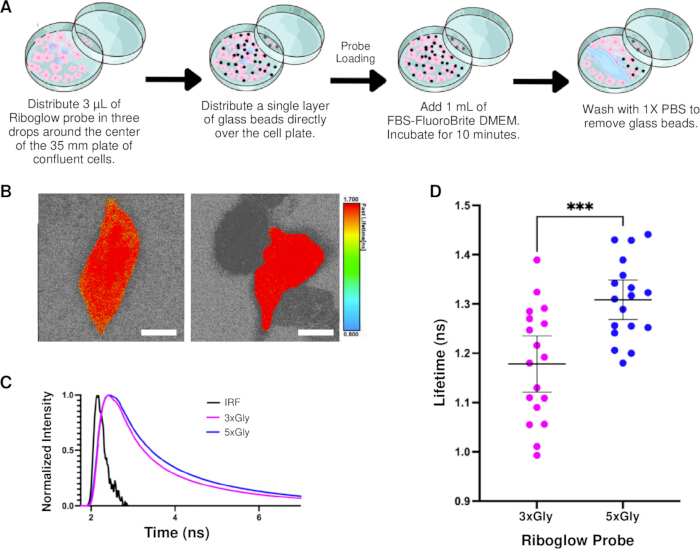
איור 4: הדמיית חיים פלואורסצנטית של תאי HeLa עם גלאי ריבוגלו 3xGly (קבוצה E) ו-5xGly (קבוצת F). (א) סקירה של תהליך טעינת הגששים. (ב) תמונות רכישה תאית של קבוצת E (משמאל) ו-F (מימין). פס קנה מידה = 10 מיקרון. (C) עקומות דעיכה לאורך החיים מותאמות שהופקו מקבוצות E ו-F וצוירו עם ה-IRF. (D) אורך חיים פלואורסצנטי עבור קבוצת E (n=18 תאים) וקבוצה F (n=18 תאים) בתאי HeLa עם מדדי שגיאה ממוצעים ו-CI של 95% שהוצגו. מבחן T לא מזווג מראה הבדל משמעותי בתוחלת החיים בין תאים טעונים ב-3xGly ו-5xGly,*** p < 0.0005. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
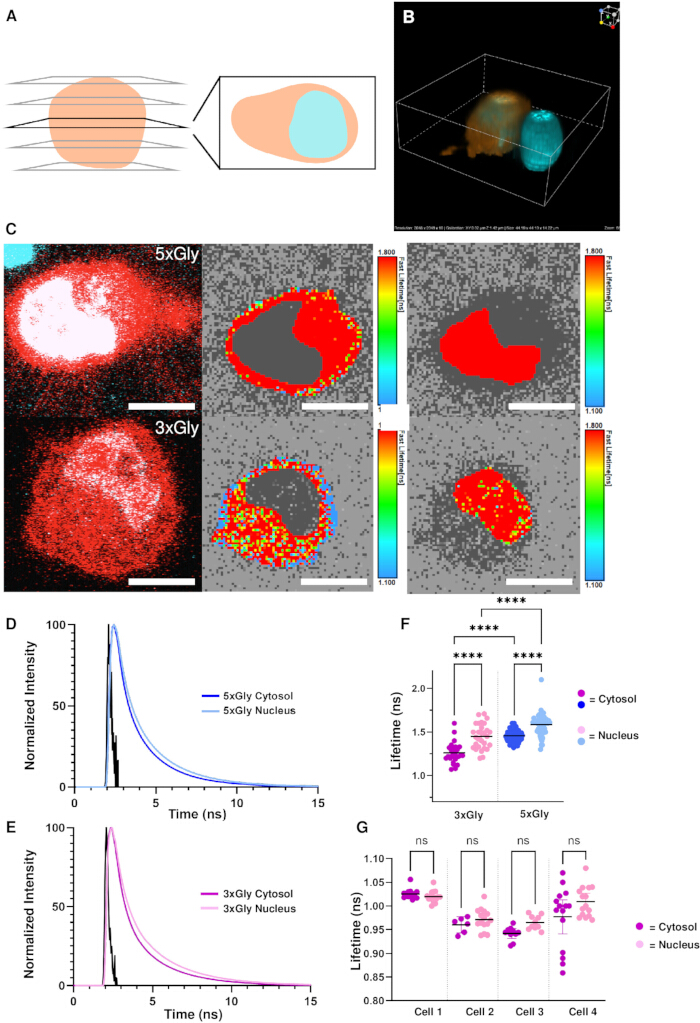
איור 5: ניתוח FLIM של תאים תת-תאיים באמצעות גלאי ריבוגלו 3xGly (קבוצה L) ו-5xGly (קבוצה M). (א) ייצוג סכמטי של הדמיית ערימת Z. (B) תמונה תלת-ממדית של תאי HeLa שנרכשה דרך תמונות Z-stack קונפוקליות. תאי HeLa הכילו כתם גרעיני כחול (סיאן) והיו טעונים בגלאי ריבוגלו (כתום). (ג) ניתוח FLIM של תאי HeLa טעונים בחרוזים. תמונות קונפוקליות (עמודה שמאלית) שימשו כמקורות לבחירת ROI (עמודות אמצעיות, ימין). פסי קנה מידה = 10 מיקרון. (D-E) עקומות דעיכת פלואורסצנציה מייצגות שהופקו מ-ROI גרעיני וציטוזולי של תאי HeLa טעונים ב- (D) 3xGly, או (E) 5xGly. עקומות מציגות ספירות פוטונים מנורמלות לעומת זמן דעיכה, וכל דעיכה מונחת על ידי פונקציית התגובה של המכשיר (IRF, שחור). (F) תרשים נקודות לכימות חיי פלואורסצנציה בין ROIs גרעיניים לעומת ציטוזוליים בין שתי קבוצות הניסוי. כל נקודה מייצגת ROI תאית יחידה. ANOVA חד-כיווני עם HSD טוקי לאחר הוק מגלה הבדלים משמעותיים בתוחלת החיים בין הגרעין לציטוזול בשתי הקבוצות (****p < 0.0001). (G) גרף נקודות של ערימות Z פלואורסצנטיות של ארבעה תאים. כל נקודה מייצגת ROI יחיד שנלקח מפרוסה אחת של ערימת Z סלולרית. מספר תשואה (ROIs) שמקורם באותו תא טופלו בזהירות, שכן הם אינם שכפולים ביולוגיים עצמאיים לחלוטין. כל ה-ROI הוגדרו באמצעות תמונת קונפוקלית כהפניה. בדיקות t זוגיות לא מגלות הבדלים משמעותיים באורך החיים בין הגרעין לציטוזול בכל ערימות ה-Z התאיות (ns p > 0.05). אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
דיון
Riboglow-FLIM מספק מסגרת להדמיית RNA כמותית באמצעות קריאות פלואורסצנציה לאורך כל החיים. יישום מוצלח של פרוטוקול זה תלוי באופן קריטי בשליטה קפדנית על רכישת פוטונים, התאמת דעיכה ודגימה בלתי מוטה. יש לאזן את ספירות הפוטונים כדי להבטיח סטטיסטיקות מספקות לרקונבולוציה n-אקספוננציאלית אמינה, תוך הימנעות מרוויה של גלאי, השפעות הצטברות ופוטוליצ'ינג שמקטינים באופן מלאכותי את תוחלת החיים המופקת. בפועל, מספרי פוטונים לא מספקים לרוב גורמים לכישלון בהתאמות, במיוחד כאשר משתמשים בתשואה נמוכה בהדמיית תאים, כמו ניסיון לפרק תאים קטנים של תאים, בעוד שטף פוטונים מופרז דוחס את עקומות ההתפרקות עקב מגבלות בזיהוי של TCSPC. לכן, בחירת זמני שהייה מתאימים, מספרי פריימים ועוצמת לייזר בהתבסס על מטרות ניסוי היא חיונית. זמן השהייה ומספר המסגרת יחד קובעים את תקציב הפוטון הכולל על ידי שליטה על משך הדגימה של כל פיקסל וכמה פעמים שדה הראייה חוזר, בהתאמה, בעוד שהספק לייזר קובע את קצב ההתרגשות ולכן את תפוקת הפוטון לכל תקופת שהייה, עם השלכות ישירות על אות לרעש, הלבנת פוטו, והצטברות. חשוב לא פחות להימנע מהתאמת יתר של עקומות דעיכה על ידי מזעור פרמטרי המודל ואישור שאריות אקראיות, שכן פרמטריזציה מופרדת באופן שיטתי את ערכי אורך החיים כלפי מטה. בחירת מדד אורך החיים היא שיקול אנליטי חשוב, שכן ממוצעים משוקללים בעוצמה (τAvAmp) וממוצעים משוקללים בעוצמה (τAvInt) משקפים היבטים שונים של דעיכה רב-מעריכית ואינם ניתנים להחלפה. בהתאם להנחיות קודמות, τAvAmp משמש כאן כי הוא מייצג באופן ישיר יותר את התרומה השבריתית של רכיבי החיים ומתאים יותר לפתרון סביבות ביולוגיות הטרוגניות23. נדרש קביעה מדויקת של פונקציית תגובת המכשיר (IRF) לחיבור רקונבולוציה אמין, במיוחד בעת פתרון רכיבים בעלי חיים קצרים. IRF מחושב משמש לשמירה על עקביות התאמה ניסיונית לאורך זמן, אך עלול לגרום לשגיאה שיטתית אם הוא סוטה מהתגובה האמיתית של המכשיר. יש לבצע מדידה תקופתית של ה-IRF באמצעות תקן יודיד אשלגן כדי לאמת התאמה בין IRF שנמדדו ל-IRFs המחושבים. לניסויים תאיים, דגימה בלתי מוטית דורשת הערכת בריאות התא ועומס הגלאי לפני חילוץ לאורך החיים, שכן החרגה לאחר מכן על בסיס תוצאות חיים יוצרת הטיית בחירה. טעינת חרוזים יוצרת שונות נוספת בחיוניות התאים, ורק תאים המציגים מורפולוגיה תקינה ואות פלואורסצנציה יציבה כפי שנקבע על ידי הדמיה של שדה בהיר או קונפוקלי צריכים להיכלל בניתוח. מבנים לא סדירים כמו עיגול, תאי טעום או תאים מעומעמים צריכים להיפסל22. לפי ניסינו, ההדמיה מתבצעת בצורה הטובה ביותר תוך כ-3 שעות של טעינת חרוזים כדי למזער עומס תאי, מה שיכול לשנות את מדידות חיי הפלואורסצנציה לאורך זמן.
התאמת עקומת דעיכה מייצגת את אתגר פתרון הבעיות הנפוץ ביותר בניסויי ריבוגלוב-FLIM. התאמות כושלות ניתן לזהות לפי פרמטרים לא פיזיקליים כגון אמפליטודות התאמה שלילית (n < 0 בהתאמות ניתוח FLIM), חפיפה לקויה בין התפרקות מותאמת למדידה, או שאריות מובנות. במקרים רבים, ניתן לשפר את איכות ההתאמה על ידי התאמת גבולות ההתאמה הזמנית כדי להוציא רעש עם אות נמוך או רעש מאוחר, תוך שמירה על האזור הליניארי של הדעיכה בקנה מידה לוגריתמי. למרות שגישה זו מפחיתה מעט את רזולוציית חיי החיים, היא משפיעה במינימום על אורך החיים הממוצע שהופצו ומאפשרת לשמור על מערכי נתונים שמישים בדרך אחרת. כאשר כשלים בהתאמה נמשכים למרות ספירת פוטונים מספקת ואופטימיזציה של גבולות, מוצדקת הוצאת הרכישה. במחקרים תאיים בקנה מידה גדול, שינויים בפרוטוקול כמו בחירת תאים מראש באמצעות הדמיה קונפוקלית ואוטומציה של רכישת FLIM מרובת נקודות יכולים להגדיל משמעותית את קצב התפוקה, אם כי גישות אלו דורשות שליטה יציבה במיקוד באמצעות מערכת המיקוד המושלמת של המיקרוסקופ כדי למזער את סטיית ה-Z במהלך סשנים ממושכים. פרוטוקול זה מודגם במערכת Nikon Ti2 Eclipse AX עם חומרת PicoQuant TCSPC, אך עקרונות רכישה וניתוח כלליים ניתנים להעברה לפלטפורמות FLIM אחרות כמו Leica SP8 או מערכות Abberior STEDYCON, בתנאי ששליטה שווה על ספירת פוטונים, רזולוציית תזמון ותצורת הגלאי נשמרת. בעוד ש-SymPhoTime 64 משמש כאן לניתוח, מערכי הנתונים המיוצאים של FLIM תואמים לחבילות תוכנת ניתוח אחרות התומכות בפורמטים מבוססי TCSPC, ומשתמשים יכולים להתאים את תהליכי העבודה בהתאם.
יש לקחת בחשבון מספר מגבלות של השיטה בעת תכנון ניסויים. ראשית, אזורים שמעניינים מוגדרים במהלך הדמיה קונפוקלית אינם יכולים להיות מועברים ישירות לתוכנת ניתוח FLIM, ויש לשרטט אותם ידנית מחדש עבור כל מאגר נתונים של FLIM, מה שמוסיף זמן ניתוח נוסף ושונות אפשרית תלויה במשתמש. בנוסף, תהליכי העבודה הנוכחיים של עיבוד FLIM דורשים ניתוח פרטני של פרוסות Z-stack, שכן התאמת וולומטרי לאורך חיים אינה נתמכת כיום ב-SymPhoTime 64, מה שמגדיל את זמן הניתוח ומפרק את סטטיסטיקות הפוטונים בין פרוסות. פיצול זה מפחית את ספירת הפוטונים האפקטיבית בכל מדידה ועלול להוריד את דיוק ההתאמה באזורים עמומים או תאים קטנים. מגבלה זו הופכת למשמעותית בהדמיה תלת-ממדית תאית, שם הפחתת ספירת הפוטונים לכל פרוסה ומורכבות המערכת מופחתת את הרזולוציה לאורך החיים. מכיוון שמספר ROIs מופקים לעיתים קרובות מאותו תא לאורך פרוסות, מדידות אלו אינן בלתי תלויות לחלוטין, מה שמפחית את החזרות הביולוגיות האפקטיביות ויש לשקול זאת בפרשנות סטטיסטית. בהתאם למגבלה זו, גודל מדגם קטן בניסויים תלת-ממדיים עלול לטשטש הבדלים ביולוגיים משמעותיים לאורך החיים הניכרים בניתוחים חד-תאיים או דו-ממדיים, עקב ירידה בספירת פוטונים בתשואה מוגדרת. בנוסף, לוקאליזציות תת-תאיות קטנות או עמומות מאוד קשות להתאמה אמינה כאשר הרזולוציה המרחבית או צפיפות הפוטון אינן מספקות, מה שמדגיש עוד יותר את הפשרה בין פירוט מרחבי לדיוק לאורך החיים ככל שמורכבות הדגימה גדלה.
למרות מגבלות אלו, פרוטוקול זה עונה על צורך שלא נענה על ידי מתן תהליך עבודה מפורט וסטנדרטי ליישום Riboglow-FLIM בין סוגי דגימות. בעוד ש-Riboglow יושם בעבר באמצעות מדידות מבוססות עוצמה, Riboglow-FLIM מאפשר קריאה כמותית ורגישה לסביבה שאינה תלויה ברובה בריכוז הגלאי וברמת ביטוי ה-RNA. מחקרים קודמים דווחו כי חיי פלואורסצנציה מציעים יתרונות על פני גישות מבוססות עוצמה, כולל ירידה ברגישות לריכוז הגשושים, הלבנת פוטואורציה והבדלי מסלול אופטיים. חשוב לציין, שלא פורסם קודם לכן פרוטוקול סטנדרטי לרכישה וניתוח של Riboglow-FLIM, ותהליך העבודה המפורט המוצג כאן קובע סט של שיקולים ניסיוניים לאיסוף נתונים בלתי מוטה, התאמת משמעת ופרשנות במערכות מבחנה, תאיות ותלת-ממדיות.
הזמינות של פרוטוקול Riboglow-FLIM מאומת מרחיבה את ערכת הכלים הניסיונית לחקר דינמיקת RNA, לוקליזציה וויסות בתאים חיים. גישה זו מתאימה היטב לניסויים הדורשים השוואה כמותית בין מחלקות תת-תאיות, נקודות זמן או תנאי ניסוי, וכן לדימות RNA מרובה באמצעות חתימות חיים אורתוגונליות. מעבר לביולוגיה בסיסית של RNA, פרוטוקול זה ישים בקלות למחקרים של עיבוד RNA, העברה, תגובת לחץ וויסות שעתוק במודלים ביולוגיים מורכבים יותר ויותר. ככל שתוכנות המדידה והניתוח של FLIM ממשיכות להתפתח, המתודולוגיה שהוקמה כאן מספקת בסיס להארכת הדמיית RNA מבוססת חיים למערכות מממד גבוה יותר ומערכות ב-in vivo.
גילויים
למחברים אין ניגודי עניינים לחשוף.
תודות
העבודה במעבדת בראזלמן נתמכת על ידי המכונים הלאומיים לבריאות (R35GM150823 ל-E.B.), קרן לוס (E.B.), ומחלקת הכימיה באוניברסיטת ג'ורג'טאון (מלגת אספנשהייד ל-L.K.S.). עבודה זו הייתה חלק מקורס המעבדה CHEM 4505 באוניברסיטת ג'ורג'טאון. כל הסטודנטים הרשומים ל-CHEM 4505 השתתפו באיסוף, ניתוח ופיתוח של מאמר זה ומופיעים כמחברים שותפים. כל המחברים מודים לסאנוג'ה מוהנאראג' ולד"ר רודריגו מיילארד על התמיכה במהלך פיתוח כתב היד. המחברים גם מודים לאמרסון בוגס וד"ר קלייטון הייזלט על המשוב הטכני שלהם.
זמינות נתונים
כל מערכי הנתונים וקבצי הניתוח יהיו זמינים במאגר (תיקיית Box זמינה לציבור בהתייחסות לכתב יד זה) עם פרסום.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 15 mL centrifuge tube | Abdos | P10402 | משמש לתרבית תאים ולהכנת bead loader |
| Cbl-3xGly-ATTO590 | לא חל | לא חל | משמש לגילוי RNA במערכת Riboglow, פרטי סינתזה זמינים כאן: https://doi.org/10.1021/acschembio.5c00917 |
| Cbl-5xGly-ATTO590 | לא חל | לא חל | משמש לגילוי RNA במערכת Riboglow, פרטי סינתזה זמינים כאן: https://doi.org/10.1021/acschembio.5c00918 |
| תרכובת ניתוק תאים | Gibco | 12605-28 | משמש לפיצול והעברת תאים |
| צלחות הדמיה לתאים | Ibidi | 81218-200 | משמש להדמיית תאים חיים |
| DMEM למיקרוסקופיה תאית | Gibco | A1896701 | משמש להדמיית תאים חיים |
| מערכת מיקרוסקופ קונפוקלי | Nikon | AX | משמש להדמיה קונפוקלית של תאים |
| DMEM | Gibco | 1195-092 | משמש לתרבית תאים של יונקים |
| FBS | Cytiva | SH30910.03 | משמש להוספת סרום ל-DMEM |
| תוכנת ניתוח הדמיית זמן חיים של פלואורסצנציה (FLIM) | PicoQuant | SymPhoTime 64, גרסה 2.9, גרסת בנייה 5818 | משמשת לניתוח FLIM |
| חרוזי זכוכית | Millipore Sigma | G4649 | משמשים לטעינת חרוזים של בדיקות Riboglow לתוך תאים חיים |
| מכסי זכוכית | VWR | 48368 062 | משמשים להדמיה in vitro. |
| HEPES | Sigma | H3375 | משמש להכנת מאגר RNA. |
| ערכת סינתזת RNA מתשואה גבוהה | Thermo Scientific | K0441 | ערכת שעתוק RNA |
| גלאי פוטומולטיפליר היברידית | PicoQuant | PMA Hybrid Series | משמש לגילוי פוטונים לצורך מדידת זמן חיים של פלואורסצנציה. |
| KCl | Fisher Scientific | BP366 | משמש להכנת מאגר RNA. |
| צביעת גרעין תאים חיים | Invitrogen | R37605 | משמש לצביעת גרעיני תאים במהלך הדמיית תאים חיים |
| צינורות קריותרפיה לתאים של יונקים | Fisher Scientific | 12-567-501 | משמשים לאחסון תאים של יונקים |
| MgCl2 | Sigma | M8266 | משמש להכנת מאגר RNA. |
| צינורות מיקרוצנטריפוגה | Thermo Scientific | 90410 | משמשים בדרך כלל בעבודות in-vitro ותרבית תאים |
| בסיס מיקרוסקופ | Nikon | Ti2 Eclipse | משמש להדמיה in vitro ותאית. |
| עדשת מיקרוסקופ | Nikon | N Plan Apochromat | משמש להדמיה in vitro ותאית. |
| תוכנת הפעלת מיקרוסקופ/תוכנת רכישת ותיקון תמונות | Nikon | NIS-Elements, גרסה 6.20.02. | |
| ספקטרופוטומטר מיקרו-נפח | Thermo Scientific | ND-2000 | משמש לקביעת ריכוז וטוהר של DNA ו-RNA |
| טיימר אירועים רב-ערוצי | PicoQuant | MultiHarp 150 | משמש ל-TCSPC להפקת זמן חיים של פלואורסצנציה מדגימות in vitro ותאיות. |
| NaCl | Fisher Scientific | BP358 | משמש להכנת מאגר RNA. |
| PBS, 1X | Corning | 21-040-CV | משמש לשטיפת תאים והסרת חרוזים |
| לייזר דיודה מבוקע ויחידת שילוב לייזר | PicoQuant | Sepia PDL 828, PicoQuant LCU | משמש לגירוי לייזר של דגימות in vitro ותאיות. |
| ערכת ניקוי RNA | New England Biolabs | T2050L | ערכת ניקוי RNA |
| מפעיל RNAse | Invitrogen | AM9780 | משמש להכנת סביבה נטולת RNAse |
| צלחות תרבית רקמות | Fisher Scientific | FB012923 | משמשות לתרבית תאים כללית וטיפול |
מקורות
- Bertrand, E., Chartrand, P., Schaefer, M., Shenoy, S. M., Singer, R. H., et al. Localization of ASH1 mRNA Particles in Living Yeast. Molecular Cell. 2 (4), 437-445 (1998).
- Johansson, H. E., Liljas, L., Uhlenbeck, O. C. RNA Recognition by the MS2 Phage Coat Protein. Seminars in Virology. 8 (3), 176-185 (1997).
- Braselmann, E., Rathbun, C., Richards, E. M., Palmer, A. E. Illuminating RNA Biology: Tools for Imaging RNA in Live Mammalian Cells. Cell Chemical Biology. 27 (8), 891-903 (2020).
- Paige, J. S., Wu, K. Y., Jaffrey, S. R. RNA Mimics of Green Fluorescent Protein. Science. 333 (6042), 642-646 (2011).
- Filonov, G. S., Moon, J. D., Svensen, N., Jaffrey, S. R. Broccoli: Rapid Selection of an RNA Mimic of Green Fluorescent Protein by Fluorescence-Based Selection and Directed Evolution. Journal of the American Chemical Society. 136 (46), 16299-16308 (2014).
- Song, W., et al. Imaging RNA polymerase III transcription using a photostable RNA–fluorophore complex. Nature Chemical Biology. 13 (11), 1187-1194 (2017).
- Dolgosheina, E. V., et al. RNA Mango Aptamer-Fluorophore: A Bright, High-Affinity Complex for RNA Labeling and Tracking. ACS Chemical Biology. 9 (10), 2412-2420 (2014).
- Chen, X., et al. Visualizing RNA dynamics in live cells with bright and stable fluorescent RNAs. Nature Biotechnology. 37 (11), 1287-1293 (2019).
- Sunbul, M., et al. Super-resolution RNA imaging using a rhodamine-binding aptamer with fast exchange kinetics. Nature Biotechnology. 39 (6), 686-690 (2021).
- Chen, M., et al. A molecular beacon-based approach for live-cell imaging of RNA transcripts with minimal target engineering at the single-molecule level. Scientific Reports. 7 (1), 1550(2017).
- Raj, A., Van Den Bogaard, P., Rifkin, S. A., Van Oudenaarden, A., Tyagi, S. Imaging individual mRNA molecules using multiple singly labeled probes. Nature Methods. 5 (10), 877-879 (2008).
- Bratu, D. P., Cha, B. -J., Mhlanga, M. M., Kramer, F. R., Tyagi, S. Visualizing the distribution and transport of mRNAs in living cells. Proceedings of the National Academy of Sciences. 100 (23), 13308-13313 (2003).
- Zuo, F., et al. Imaging the dynamics of messenger RNA with a bright and stable green fluorescent RNA. Nature Chemical Biology. 20 (10), 1272-1281 (2024).
- Grün, F., et al. Super-Resolved Protein Imaging Using Bifunctional Light-Up Aptamers. Angewandte Chemie International Edition. 63 (51), e202412810(2024).
- Braselmann, E., et al. A multicolor riboswitch-based platform for imaging of RNA in live mammalian cells. Nature Chemical Biology. 14 (10), 964-971 (2018).
- Sarfraz, N., Moscoso, E., Oertel, T., Lee, H. J., Ranjit, S., et al. Visualizing orthogonal RNAs simultaneously in live mammalian cells by fluorescence lifetime imaging microscopy (FLIM). Nature Communications. 14 (1), 867(2023).
- Sarfraz, N., Shafik, L. K., Stickelman, Z. R., Shankar, U., Moscoso, E., et al. Evaluating Riboglow-FLIM probes for RNA sensing. RSC Chemical Biology. 5 (2), 109-116 (2024).
- Sarfraz, N., et al. Establishing Riboglow-FLIM to visualize noncoding RNAs inside live zebrafish embryos. Biophysical Reports. 3 (4), 100132(2023).
- Datta, R., Heaster, T. M., Sharick, J. T., Gillette, A. A., Skala, M. C. Fluorescence lifetime imaging microscopy: fundamentals and advances in instrumentation, analysis, and applications. Journal of Biomedical Optics. 25 (07), 1(2020).
- Stickelman, Z., Sarfraz, N., Rice, M. K., Lambeck, B. J., Milkovich, S., et al. Expanding the Riboglow-FLIM Toolbox with Different Fluorescence Lifetime-Producing RNA Tags. Biochemistry. 64 (11), 2429-2438 (2025).
- Shafik, L. K., et al. Evaluating Linker Architecture in RNA-Detecting Riboglow Probes and Effects on Fluorescence Turn-On. ACS Chemical Biology. 21 (2), 371-379 (2026).
- Cialek, C. A., Galindo, G., Koch, A. L., Saxton, M. N., Stasevich, T. J. Bead Loading Proteins and Nucleic Acids into Adherent Human Cells. Journal of Visualized Experiments. (172), e62559(2021).
- Sarfraz, N., Braselmann, E. Practical guide to fluorescence lifetime imaging microscopy. Molecular Biology of the Cell. 36 (6), tp1(2025).
הדפסות חוזרות והרשאות
