עמידות לאנטיביוטיקה בקרב זני Escherichia coli פולשניים דבקים מהווה אתגרים בהערכת פלישה חיידקית באמצעות בדיקת הגנה מסורתית של ג'נטמיצין. מתוארת שיטה משופרת להערכת פלישת חיידקים באופן כמותי על ידי מניית יחידות יוצרות מושבות ובאופן איכותי באמצעות הדמיה של תאים נגועים באמצעות מיקרוסקופ קונפוקלי אימונופלואורסצנציה.
מאמר שיטה
בדיקת הגנה על אמיקצין לכימות והדמיה של פלישת תאי אשריכיה קולי
במאמר זה
סיכום
תקציר
פלישת תאי אפיתל היא פנוטיפ מרכזי עבור פתוגנים מעיים רבים, כולל סלמונלה, שיגלה וויבריו. פתוגן פולשני מתפתח הוא אשריכיה קולי (AIEC) הפולש-דבק, המעורב בפתוגנזה של מחלת מעי דלקתית (IBD). זני AIEC חסרים גורמי אלימות הנפוצים עם פתוגנים פולשים אחרים, מה שמקשה על זיהוי גנטי. כתוצאה מכך, זני AIEC מסווגים כפנוטיפיים על פי יכולתם לפלוש לתאי אפיתל באמצעות מבחן הגנה מגנטמצין סטנדרטי בשטח. עם זאת, מאחר שזני AIEC מבודדים לעיתים קרובות מחולי IBD המקבלים אנטיביוטיקות שונות כחלק משגרת הטיפול שלהם, עליית הבידוד העמיד לגנטמיצין הפכה את הבדיקה הזו לפחות אמינה לסיווג AIEC. כדי לעקוף בעיה זו, פותח מבחן הגנה חלופי מבוסס אמיקאסין כדי לכמת ולהמחיש את פלישת תאי AIEC. בדיקה זו עושה שימוש באמיקסין, אמינוגליקוזיד חצי-סינתטי רחב טווח שמכוון ביעילות זנים עמידים לאמינוגליקוזידים אחרים תוך שמירה על תאי מארח אאוקריוטיים מחוץ לתאית. לכן, חיידקים חוץ-תאיים נהרגים במהלך זיהום בעוד שחיידקים תוך-תאיים "מוגנים". זה מהווה בסיס לבדיקה כמותית להשוואת פולשניות זן, הנמדדת כאחוז הפלישה באמצעות יחידות יוצרות מושבות (CFU) שהחלימו לאחר ההדבקה. בדיקה זו יכולה לשמש גם כמדידה איכותית של פלישה על ידי צביעת תאי אפיתל נגועים והמחשת תאים אלה באמצעות מיקרוסקופיה קונפוקלית. שיטה זו משמשת ככלי אבחון לסינון חולי IBD לאיתור AIEC, שניתן ליישם גם על פתוגנים עמידים לרב-תרופות נוספים להערכת פלישת תאים, המדד לאלימות ופתולוגיות.
מבוא
מחלת מעי דלקתי (IBD), הכוללת מחלת קרוהן (CD) וקוליטיס כיבית, היא מחלה דלקתית כרונית במערכת העיכול המשפיעה על מיליוני אנשים ברחבי העולם1. למרות העלייה בשכיחות הגלובלית של מחלות מעי דלקתיות, האטיולוגיה המדויקת שלו נותרה לא ברורה, בשל האינטראקציה המורכבת של גורמים גנטיים, סביבתיים, מיקרוביאליים ואימונולוגיים 2,3. מאפיין ייחודי של IBD הוא הרכב מיקרוביאלי במעי משתנה, שלרוב מונע על ידי גורמים סביבתיים, כמו תזונה עתירת סוכר ושומן נפוצה במדינות מתועשות. המיקרוביוטה של חולי IBD מאופיינת לעיתים קרובות במגוון מיקרוביאלי מופחת, העשרת גמאפרוטאובקטריה פתוגנית, ודלדול של פירמיקוטים מגנים 6,7. אצל חולים עם CD, Escherichia coli (E. coli) מועשרת במיקרוביום המעי, מתחברת ופולשת לריר המעיים, ומקשרת באופן חיובי למחלה פעילה וקשה8,9. פתוטיפ זה המתפתח של E. coli הקשור ל-CD נקרא Escherichia coli פולש-דבק (AIEC).
AIEC הם פתוגנים אופורטוניסטיים גראם-שליליים המתיישבים ברירית האילאל של חולי CD בנטייה גבוהה יותר מאשר בקרים בריאים10. זני AIEC שבודדו מחולי CD הם מגוונים גנטית, ולעיתים כוללים את כל הפילוגרופונים של E. coli הכוללות גם קומנסל וגם פתוגני של E. coli11. בניגוד לפתוגנים כמו שיגלה וסלמונלה, שמסתמכים על שימוש במערכות הפרשה מסוג III כדי להקל על פלישת תאי המארח, ל-AIEC חסרות מערכות אלימות שמורותאלו 12. לכן, ההבנה שלנו לגבי אלימות AIEC נשענת במידה רבה על הפנוטיפ הפנימי שלה, שמאופיין ביכולתו להיצמד ולפלוש לתאי אפיתל ולשרוד בתוך המאקרופאגים10.
פלישת תאי אפיתל על ידי AIEC מתווכת על ידי גורמי אלימות מרובים, כולל פילוס סוג 1 ופימבריה פולרית ארוכה. FimH, הממוקם בקצה הפילוס מסוג 1, מתווך הידבקות לשאריות מנוז על קולטן המארח הגליקוזילי הכבד CEACAM613. קישור זה מעודד כניסת AIEC לאנטרוציטים ותומך בשכפול התוך-תאי14. AIEC גם דבק בתאי מיקרופולד (M), תאי אפיתל מיוחדים הממוקמים מעל כתמי פייר, דרך אינטראקציות בין פימבריה פולרית ארוכה לבין גליקופרוטאין חלבון על פני תאי M 215,16. הידבקות זו מאפשרת ל-AIEC לעבור בין תאי M, להגיע למאקרופאגים הבסיסיים ולהפעיל ביטוי של ציטוקינים פרו-דלקתיים כגון TNF-α, אשר לא רק מקדם דלקת אלא גם תומך בשכפול חיידקים בתוך המאקרופאגים17,18. מנגנונים פתוגניים אלה משוערים כממשיכים דלקת כרונית במארח, כפי שנצפה ב-CD.
ה-AIEC מוגדרת לפי הפנוטיפ המבחנה שלה, מה שהופך את מבחן ההגנה של ג'נטמיצין לחיוני לסיווג זנים ולגילוי גורמי אלימות8. גישה זו עלולה להיות מסובכת על ידי מבודדים עמידים לגנטמיצין, מה שעלול לגרום לסיווגם השגוי כפולש11. כדי לעקוף את הבעיה הזו, נבדקו אנטיביוטיקות חלופיות שהורגות ביעילות מבודדים עמידים לגנטמיצין מבלי לחדור לממברנות תאי המארח. באמצעות גישה זו, זוהה אמיקאצין כתחליף מתאים לג'נטמיצין, והציע יעילות והתאמה דומות לבדיקות פלישה סטנדרטיות, וכן ציטוטוקסיות מינימלית, כפי שהודגם בצביעת כחול טרייפן במחקרים קודמים ואומת כאן באמצעות בדיקת שחרור לקטט דה-הידרוגנאז (איור משלים 1)11. אמיקסין הוא אמינוגליקוזיד חצי-סינתטי שמקורו בקאנאמיצין, המעכב את צמיחת החיידקים על ידי הפרעת סינתזת חלבונים. אמיקצין יעיל במיוחד נגד חיידקים גראם-שליליים עמידים לרב-תרופות, כולל פסאודומונס, אקינטובקטר ו-Escherichia species19. ראוי לציין כי שינויים מבניים בעמוד השדרה של קאנמיצין הופכים את אמיקאצין לפחות רגיש לאנזימים המפעילים אמינוגליקוזידים חיידקיים19. כתוצאה מכך, אמיקאסין מהווה אלטרנטיבה איתנה לגנטמצין למיקוד בחיידקים עמידים לתרופות מרובות בבדיקות פלישה. הפרוטוקולים הבאים מתארים כיצד להעריך את הפנוטיפ הפלישי של E. coli באמצעות זן הייחוס NRG857c והן באמצעות מבודדים קליניים עם מבחן ההגנה של אמיקאצין.
פרוטוקול
הערה: פרוטוקול זה מתאר שיטה להערכת יכולת הפלישה של זני AIEC לתאי האפיתל של Caco-2. ריכוז האמיקאצין המשמש בפרוטוקול זה (240 מיקרוגרם/מ"ל) תואם ל-10× הריכוז המעכב המינימלי (MIC), כפי שנקבע באמצעות רצועות בדיקת MIC אמיקאצין על פני פאנל של 32 מבודדים קליניים מייצגים של AIEC מ-13 חולים עם מחלת מעי דלקתית11. החוקרים צריכים לקבוע את ה-MIC עבור הבידוד של AIEC שלהם לפני ביצוע הבדיקה (ראו טבלת חומרים), שכן רגישות לאנטיביוטיקה יכולה להשתנות בין מבודדים. סעיף 1 מפרט את מבחן ההגנה על אמיקאצין לכימות אחוז הפלישה, וסעיף 2 מתאר את מבחן ההגנה של אמיקאצין למיקרוסקופיה קונפוקלית.
1. מבחן הגנה מפני אמיקסין לכימות אחוז פלישה
- ציפוי קולגן של לוחות 24 בארות
- דילל 35.29 מיקרוליטר של חומצה אצטית קרחונית סטרילית (ראו טבלת חומרים) ב-30 מ"ל של 1× PBS (ראו טבלת חומרים) בצינור קוני של 50 מ"ל.
- פיפט 300 מיקרוליטר קולגן (ראו טבלת חומרים) לתוך 1× PBS עם תמיסת חומצה אצטית.
- פתרון Vortex ל-10 שניות לערבוב טוב.
- יש לשחרר 250 מיקרוליטר מתמיסת הקולגן המדוללת לכל באר של צלחת סטרילית עם 24 בארות שטופלה בתרבות רקמות.
הערה: תמיסת הקולגן של 30 מ"ל מספיקה כדי לצפות כחמישה לוחות עם 24 בארים. - הטה את הפלטה לכל הכיוונים כדי לוודא שהתמיסה כיסתה באופן אחיד את תחתית כל באר.
- דגרו את הלוחות בטמפרטורה של 37 מעלות צלזיוס למשך שעתיים כדי לאפשר לקולגן להיצמד למשטח הפלסטי.
- לאחר סיום הדגירה, יש לשאוב את תמיסת הקולגן מכל באר.
- פיפט 1 מ"ל של 1× PBS לכל באר כדי לשטוף את שאריות הקולגן ולשאוף כל באר. חזור על השלב הזה עוד פעמיים (3 שטיפות בסך הכל).
- לוחות ייבוש בתוך ארון בטיחות ביולוגי כדי להבטיח שכל הלחות הנראית לעין התאדהה.
הערה: צלחות יכולות לשמש מיד לזריעה תאים או לאחסן בטמפרטורת החדר. בעת אחסון הלוחות, יש לאטום את ההיקף החיצוני עם פרפילם סטרילי או לשים אותם בתוך שקית זיפלוק סטרילית.
- הכנת תמיסות מלאי אמיקאצין
- שקלו 240 מ"ג של דיסולפט אמיקאצין (ראו טבלת חומרים) והעברו לצינור מיקרוצנטריפוגה בנפח 1.5 מ"ל.
- פיפט של 1 מ"ל מים סטריליים וממס אמיקאצין באמצעות מערבולת, מה שמניב ריכוז סופי של 240 מ"ג/מ"ל (1000× מאגר).
- הכינו 20 מיקרו-ליטר אליקוות של תמיסת אמיקאצין ואחסנו בטמפרטורה של -20 מעלות צלזיוס.
הערה: אמיקסין יציב בטמפרטורה של מינוס 20°C למשך 6–12 חודשים. הכינו אליקווטים חד-פעמיים כדי למזער מחזורי הקפאה-הפשרה חוזרים.
- הכנת תאי Caco-2
- הפשרת תאי Caco-2 ממלאי קפוא
- הכינו מדיום גדילה מלא על ידי תוספת Modified Eagle Medium של Dulbecco עתיר גלוקוז (DMEM, ראו טבלת חומרים) עם 10% סרום בקר עוברי (FBS, ראו טבלת חומרים) ו-1% תמיסה אנטיביוטית-אנטי-נוזלית (ראו טבלת חומרים).
- חימום מראש באמבט מים של 37 מעלות צלזיוס למשך 30 דקות.
- הניחו את הבקבוקון הקפוא של תאי Caco-2 באמבט מים בטמפרטורה של 37°C ודגרו אותה למשך 1–2 דקות עד שהתאים ייפשרו לחלוטין.
- הוציאו את הבקבוקון מאמבט המים וריססו את החלק החיצוני של הבקבוקון ב-70% אתנול.
- בתוך ארון בטיחות ביולוגי, יש פיפטה של התאים לצינור קוני בקוטר 15 מ"ל המכיל 9 מ"ל מדיום גדילה מלא.
- תאי צנטריפוגה ב-500 × גרם למשך 5 דקות בטמפרטורת החדר.
- שאופי את הסופרנטנט ומשלים מחדש את כדור התא ב-5 מ"ל של מדיום גדילה מלא.
- העבר תאים לבקבוק תרביתרקמה בגודל 75 ס"מ 2 (T75) המכיל 10 מ"ל של מדיום גדילה חם ומלא.
- סובב את הפלטה 3 פעמים כדי לוודא שהתאים מפוזרים באופן שווה בתחתית הצלחת.
- דגרו את התאים בטמפרטורה של 37 מעלות צלזיוס עם 5%CO2 עד שהתאים מגיעים לחיבור ~90% (6–7 ימים).
הערה: ההתאמה מוערכת על ידי קירוב ויזואלי של התאים באמצעות מיקרוסקופ אור. החלפת מדיה כל 3 ימים בזמן שהתאים מתאוששים.
- זריעת תאי Caco-2
- מדיום גדילה מלא לפני חימום ו-0.25% (עם וולט) טריפסין-EDTA (ראו טבלת חומרים) באמבט מים בטמפרטורה של 37 מעלות צלזיוס.
- כאשר תאי Caco-2 מגיעים ל-~90% קונגפלוס, יש לשאוב מדיה של תרבית תאים ולהוסיף 2 מ"ל של טריפסין-EDTA. הטה את הבקבוק כדי לאפשר לתמיסת הטריפסין לכסות את כל המשטח התחתון של הבקבוק כדי להבטיח שכל עקבות ה-FBS יושבתו.
- שאיפת תמיסת טריפסין-EDTA והוספה 3 מ"ל של טריפסין-EDTA. דגרו את התאים בטמפרטורה של 37 מעלות צלזיוס עם 5%CO2 למשך 5–15 דקות. הדמיינו את התאים באמצעות מיקרוסקופ אור בנקודות זמן שונות במהלך תקופת הדגירה כדי לצפות בעיגול התאים, מה שמעיד שהתאים נפרדו.
הערה: הימנעו מפגיעה בצד הבקבוקון כדי להקל על ניתוק התאים, שכן זה עלול לגרום להתאים להתגבש. - פיפט 6 מ"ל של מדיום גדילה מלא כדי לנטרל את תמיסת טריפסין-אדטה ולערבב על ידי פיפטינג עדין למעלה ולמטה כדי להחזיר את התאים.
- תאי פיפטה לתוך צינור קוני של 15 מ"ל וצנטריפוגה ב-500 × גרם למשך 5 דקות לתאי פלט.
- שאיפת מדיום ותלייה מחדש של תאים ב-3 מ"ל של מדיום גדילה מלא.
- העבר 10 מיקרוליטר מתאי Caco-2 התלויים לצינור מיקרוצנטריפוגה בנפח 1.5 מ"ל. הוסיפו 10 מיקרול צבע כחול טרייפן (ראו טבלת חומרים) לצינור המיקרוצנטריפוגה בנפח 1.5 מ"ל וערבבו על ידי פיפטינג למעלה ולמטה מספר פעמים.
- פיפטה של 10 מיקרוליטר מתערובת Caco-2/Trypan Blue לסלייד של מונה תאים (ראו טבלת חומרים). מונה את מספר התאים החיים כדי לחשב את כדאיות התאים.
הערה: בעת ספירת מספר תאי Caco-2 הקיימים, יש לשקול רק את מספר התאים החיים, ולא את המספר הכולל של התאים לזריעה. - תאי Caco-2 זרעים בצלחת עם 24 בארות או בקבוק T75.
- לפלטת 24 בארות, עקבו אחר השלבים הבאים:
- זרע תאי Caco-2 בריכוז של 1 x 10⁵ תאים/מ"ל באמצעות המשוואה למטה:
[(1 × 10⁵ תאים)(מספר בארות שזרעו + 2)] / [ריכוז ספירת תאים בר קיימא (תאים/מ"ל)] = תאים (מ"ל) - הסר את נפח התאים שחושב לעיל מתאי Caco-2 התלויים בשלב 3.2.6 לצינור קוני של 15 מ"ל. חשב את נפח מד הגידול המלא שיש להוסיף לתאים באמצעות המשוואה למטה:
(מספר הבארות שזרעו + 2 בארות) - תאים (mL) = מדיה (mL)
הערה: "+2 בארות" בחישוב נועדו להתחשב בטעות בפיפטינג. - פיפט את נפח המדיה שחושב לעיל לקונאלי של 15 מ"ל המכיל את תאי Caco-2 ומערבב על ידי פיפטינג למעלה ולמטה מספר פעמים.
- פיפט 1 מ"ל תאי Caco-2 במדיום גדילה מלא (ריכוז סופי 1 x 10⁵ תאים/מ"ל) לכל באר של לוח 24 בארות מצופה בקולגן.
- דגרו צלחת בטמפרטורה של 37 מעלות צלזיוס עם 5%CO2 עד שהתאים מגיעים לחיבור ~90% (3–4 ימים).
- זרע תאי Caco-2 בריכוז של 1 x 10⁵ תאים/מ"ל באמצעות המשוואה למטה:
- לבקבוק T75, עקבו אחר השלבים הבאים:
- העבר 7.5 x10 תאים ברי קיימא לבקבוק T75 באמצעות המשוואה הבאה:
[(7.5 × 10⁵ תאים)] / [ריכוז ספירת תאים בר קיימא (תאים/מ"ל)] = תאים (mL)
הערה: מספר התאים הבריים להוסיף לבקבוק T75 נקבע על פי הנחיות ATCC לתרבות תאים של Caco-2. - הסר את נפח התאים שחושב לעיל והעבר לבקבוק T75. חשב את נפח מד הגידול המלא שיש להוסיף לתאים באמצעות המשוואה למטה:
15 מ"ל - נפח התאים שנוספו לבקבוק = מדיה (מ"ל) - פיפט את נפח המדיה המחושב למעלה לבקבוק T75.
- סובב את הצלחת בעדינות מספר פעמים כדי לפזר את התאים באופן שווה בתחתית הבקבוקון. דגרו בטמפרטורה של 37 מעלות צלזיוס עם 5%CO2 עד שהתאים מגיעים ל-~90% מפגש (3–4 ימים).
- העבר 7.5 x10 תאים ברי קיימא לבקבוק T75 באמצעות המשוואה הבאה:
- הפשרת תאי Caco-2 ממלאי קפוא
- מבחן הגנה על אמיקאסין
הערה: ודאו שכל מדיום תרבית התאים מחומם מראש ל-37 מעלות צלזיוס לפני תחילת הניסוי.- הכנת חיידקים
- באמצעות מקל עץ סטרילי או קצה פיפטה סטרילית, גרדו בעדינות חיידקים ממאגר גליצרול חיידקי קפוא המאוחסן בטמפרטורה של -80°C והפכו פסים על פלטת אגר LB למושבות בודדות. דגור את הצלחת בטמפרטורה של 37 מעלות צלזיוס במהלך הלילה.
- באמצעות מקל עץ סטרילי או קצה פיפטה סטרילית, קחו מושבה אחת מהצלחת האגר והחריכו לתוך 3 מ"ל מרק LB. דגרו את התרבית ב-37 מעלות צלזיוס עם ניעור ב-200 סל"ד במהלך הלילה.
- בצע דילול של 1:10 של התרבית הלילית במרק 1 מ"ל LB ומדד את הצפיפות האופטית ב-600 ננומטר (OD600) של התרבית באמצעות ספקטרופוטומטר.
- חישוב ריבוי הזיהומים (MOI)
- העבר 100 מיקרוליטר מהתרבית הלילית לצינור מיקרוצנטריפוגה בנפח 1.5 מ"ל וצנטריפוגה בטמפרטורה של 6000 × גרם למשך 10 דקות בטמפרטורה של 4 מעלות צלזיוס.
- שאפו את הסופרנטנט בזהירות כדי לא להפריע לכדור התא. החזירו את הכדור למרחק של 1 מ"ל של סרום ומדיה ללא אנטיביוטיקה.
הערה: זהו דילול של תרבית החיידקים ביחס 1:10 ללילה. לחישוב MOI, השתמשו בערך OD600 הגולמי המחושב עבור תרבית הלילה המדוללת בשלב 4.1.3, ולא בערך OD600 שתוקן עבור גורם הדילול. - חשב את נפח ההשעיה החיידקית שיש להוסיף משלב 4.2.2 כדי להדביק תאי Caco-2 ב-MOI של 10 באמצעות החישוב הבא:
[1 יחידת OD/2.4 × 109 חיידקים] × [10 חיידקים/תא] × [1 מ"ל × OD 1:10] × 1 ×105 ×103 = נפח (uL)
הערה: רשמו בקפידה את הנפח המחושב עבור כל דגימה, שכן ערך זה ישמש בהמשך לחישוב ה-CFU/mL. נפח ההשעיה החיידקית הזה מיועד רק לבאר אחת בתוך לוח 24 הבארות. - הכינו את מדיום הזיהום על ידי העברת נפח ההשעיה החיידקית המחושב משלב 4.2.3 לצינור מיקרוצנטריפוגה סטרילי בנפח 1.5 מ"ל. הוסף 1 מ"ל סרום ומדיה חופשית מאנטיביוטיקה-אנטי-מיקוטית. ערבב בעדינות על ידי פיפטינג למעלה ולמטה מספר פעמים.
- זיהום תאי Caco-2
- הסר את פלטת 24 הבארים המכילה שכבות מונולייריות תא Caco-2 מהאינקובטור ושאוף את כל המדיום.
- פיפט של 1 מ"ל סרום ומדיה חופשית אנטיביוטיקה-אנטי-מיקוטית לכל באר ושאיפה להסרת עקבות של מדיום המכיל סרום. חזור על השלב הזה עוד פעם אחת (2 שטיפות בסך הכל).
הערה: הפחיתו לחץ ואקום בעת השאיפה כדי למנוע הפרעה לשכבת התא. - פיפט 1 מ"ל של מדיום ההדבקה משלב 4.2.4 לכל באר של צלחת 24 בארות המכילה את תאי Caco-2.
- צנטריפוגה את לוח 24 הבארים ב-500 × גרם למשך 15 דקות בטמפרטורת החדר כדי לסנכרן מגע חיידקי עם תאי האפיתל.
- דגרו את צלחת 24 הבארות בטמפרטורה של 37°C עם 5%CO2 למשך 3 שעות כדי לאפשר פלישה חיידקית.
- במהלך תקופת הדגירה, קבעו את ה-CFU/mL של התרבית המדוללת בלילה משלב 4.2.2 על ידי ביצוע דילול סדרתי של 10 פעמים ב-PBS סטרילי 1× באמצעות פלטת 96 בארים.
- להכנת כל דילול, העבירו 200 מיקרוליטר מהתרבית המדוללת בלילה משלב 4.2.2 לבאר הראשונה בצלחת.
- פיפטה של 20 מיקרוליטר של התרבית לשורה הבאה המכילה 180 מיקרוליטר של 1× PBS. ערבב על ידי פיפיפטינג למעלה ולמטה 10 פעמים. חזור על התהליך עד שהדילול מגיע ל-10-6 עם קצה פיפטה חדש להעברה בכל פעם.
- לוח של 10 מיקרוליטר של דילול נקודות בשלושה שכפולים מהדילול של 10-2 עד 10-6 על לוחות אגר LB. תן לנקודות להיספג לאגר תחת להבה.
- דגרו צלחות ללילה בטמפרטורה של 27–30 מעלות צלזיוס כדי למנוע צמיחת יתר של מושבות ולהבטיח מושבות נפרדות וברורות.
הערה: ציפוי נקודות בשלושה עותקים משפר את דיוק הכימות ומאפשר זיהוי במגוון ריכוזי חיידקים. טמפרטורת דגירה נמוכה מאטה את צמיחת החיידקים, ומאפשרת הערכה מדויקת יותר של CFU מדגימות בריכוז גבוה.
- הכינו מדיום המכיל אנטיביוטיקה על ידי הוספת 240 מיקרוגרם/מ"ל אמיקאצין לסרום שהתחמם מראש ולמדיה החופשית מאנטיביוטיקה-אנטי-מיקוטית.
- לאחר סיום ההדבקה של 3 שעות, יש לשאוב את המדיה מהשכבות המונוליריות של תאי Caco-2. הוסיפו 1 מ"ל סרום ומדיה חופשית מאנטיביוטיקה-אנטימיקוטית לכל באר. חזור על השלב הזה עוד פעם אחת (2 שטיפות בסך הכל).
- פיפטה של 1 מ"ל של 240 מיקרוגרם/מ"ל מדיה המכילה אמיקאסין לכל באר ודגירה בטמפרטורה של 37 מעלות צלזיוס עם 5% CO2 למשך שעה אחת כדי לסלק חיידקים חוץ-תאיים.
- שאפו את המדיה מכל באר והוסיפו 1 מ"ל של 1× PBS כדי לשטוף חיידקים דביקים שנהרגו על ידי אמיקסין. חזור על השלב הזה עוד פעם אחת (2 שטיפות בסך הכל).
- פיפט 200 מיקרוליטר של 1% טריטון-X-100 (ראו טבלת חומרים) מדולל ב-1× PBS לכל באר. דגרו על שייקר אורביטלי במהירות 90 סל"ד למשך 10 דקות כדי לפרק תאי אפיתל.
- נתק תאים מלוח 24 הבארות על ידי פיפטינג למעלה ולמטה כ-30 פעמים לכל באר.
הערה: מכיוון שציפוי הפלטות בקולגן משפר את ההיצמדות לתא, חשוב לוודא שהמונולייר נפרד מהצלחת. ניתן לאשר זאת חזותית על ידי השוואת באר מפורקת ביחס לבאר לא מפורקת לבאר ללא תאי Caco-2, שייראו ברורים. - בצע דילול סדרתי של 10 פעמים של הליזטים של התאים בלוח 96 בארות באמצעות 1× PBS.
הערה: בצע דילול סדרתי עד לדילול 10-3 . - לוח 10 מיקרוליטר של דילול נקודתי בשלושה כפייה, החל מהלא מדולל ועד 10-3 דילולים, על פלטות אגר LB. תן לנקודות להיספג לאגר תחת להבה. דגרו צלחות ללילה בטמפרטורה של 27–30 מעלות צלזיוס כדי למנוע צמיחת יתר של מושבות ולהבטיח מושבות נפרדות וברורות.
- ספירת מושבות וחישוב אחוזי פלישה
- לאחר דגירה בלילה, סופרים את מספר המושבות בכל דילול נקודתי מהתרבות המדוללת בלילה והליזאט שנלקח. בחרו דילול שבו כל נקודה מכילה יותר מ-7 מושבות מבודדות. השתמשו באותו דילול על פני המשולש כדי לחשב את מספר המושבות החיידקיים הממוצע שנאספו עבור אותו דילול.
הערה: ספרו דילול נקודתי המכיל מושבות בודדות ומבודדות היטב והימנעו מספירת דילול שמכיל מושבות שנוגעות זו בזו. - חשב את ה-CFU/mL של האינוקולום, CFU/mL שנאספ, ואחוז הפלישה באמצעות המשוואות הבאות:
Inoculum CFU (CFU/mL):
חיסון CFU = (מספר ממוצע של מושבות) (גורם דילול) (נפח מדיום זיהום (μL) x 100
נשלף CFU (CFU/mL):
CFUנלקח = (מספר ממוצע של מושבות) (מקדם דילול) x 100
אחוז פלישה (%):
פלישה (%) = [(CFUנשלף)/(חיסון CFU)] × 100
- לאחר דגירה בלילה, סופרים את מספר המושבות בכל דילול נקודתי מהתרבות המדוללת בלילה והליזאט שנלקח. בחרו דילול שבו כל נקודה מכילה יותר מ-7 מושבות מבודדות. השתמשו באותו דילול על פני המשולש כדי לחשב את מספר המושבות החיידקיים הממוצע שנאספו עבור אותו דילול.
- הכנת חיידקים
2. בדיקת הגנה מאמיקאסין למיקרוסקופיה קונפוקלית
- הכנת כיסויי כיסוי מצופים פולי-אל-ליזין סטריליים
- בארון בטיחות ביולוגי השתמש במלקחיים סטריליים להנחת כיסויי כיסוי מצופים פולי-אל-ליזין (ראו טבלת חומרים) על מגבת נייר טבולה ב-70% אתנול.
- רססו את שני הסליפים של הכיסוי ב-70% אתנול, תוך שימוש במלקחיים סטריליים כדי להפוך את הכיסוי לכל צד.
- אפשר לכיסויי הכיסוי להתייבש תחת אור UV בארון הבטיחות הביולוגית עד שיתייבשו לחלוטין.
- זריעת תאי Caco-2 בצלחת עם 6 בארות
- בארון בטיחות ביולוגית, הניחו כיסוי אחד מצופה פולי-L-ליזין בכל באר של לוח עם 6 בארות.
- חזור על שלבים 3.2.1–3.2.8 מתוך סעיף "זריעת תאי Caco-2".
- זרעי תאי Caco-2 בריכוז של 1 x 10⁵ תאים/מ"ל בלוח עם 6 בארות באמצעות המשוואה למטה:
[(1 ×10 5 תאים)(מספר הבארות שזרעו + 2)] / [ריכוז ספירת תאים בר-קיימא (תאים/מ"ל)] × 2 = תאים (מ"ל)
הערה: ערך זה מוכפל ב-2 כדי להתחשב בהוספת 2 מ"ל מדיה לכל באר כאשר משתמשים בלוח עם 6 בארות. - הסר את נפח התאים שחושב למעלה לצינור קוני של 15 מ"ל. חשב את נפח מד הגידול המלא שיש להוסיף לתאים באמצעות המשוואה למטה:
(מספר הבארות שזרעו + 2 בארות) x 2 - תאים (mL) = מדיה (mL) - פיפט את נפח המדיה שחושב לעיל לקונאלי של 15 מ"ל המכיל את תאי Caco-2 ומערבב על ידי פיפטינג למעלה ולמטה מספר פעמים.
- הוסף 2 מ"ל של תאי Caco-2 במדיום גדילה מלא לכל באר של לוח 6 בארות (ריכוז סופי 1 ×10 5 תאים/מ"ל).
- דגרו את הפלטה בטמפרטורה של 37 מעלות צלזיוס עם 5%CO2 עד שהתאים מגיעים לחיבור ~90% (2–3 ימים).
- בדיקת הגנה מפני אמיקסין
- בצע את מבחן ההגנה על אמיקאצ'ין כפי שכתוב בסעיף 1, שלבים 4.1-4.3.10
- צביעת אימונופלואורסצנציה
- קיבוע וחדירות של תאי Caco-2
- תיקון תאים על ידי הוספת 1 מ"ל של 4% פאראפורמלדהיד מדולל ב-1X PBS (ראו טבלת חומרים) לכל באר. דגרו 10 דקות בטמפרטורת החדר בחושך.
- שואף כל אחד היטב והוסיף 1 מ"ל של 1× PBS לשטוף תאים. חזור על השלב הזה עוד פעמיים (3 שטיפות בסך הכל).
הערה: תאים יכולים להיאחסן במשך מספר ימים ב-1X PBS בטמפרטורה של 4 מעלות צלזיוס. - הוסיפו 1 מ"ל של 0.1% טריטון-X-100 לכל באר ודגרו במשך 10 דקות בטמפרטורת החדר כדי לחדיר תאים.
- שאיפת תמיסת Triton-X-100 והוספה 1 מ"ל של 1× PBS לכל באר. לדגור תאים עם 1× PBS למשך 5 דקות. חזור על השלב הזה עוד פעמיים (3 שטיפות בסך הכל).
- חסימה וצביעת נוגדנים
- כדי למנוע קשירת נוגדנים לא ספציפיים, הכינו תמיסת חסימה עם אלבומין סרום בקר (BSA) של 1%, 22.52 מ"ג/מ"ל גליצין ב-1× PBS + 0.1% Tween20 (ראו טבלת חומרים).
- הוסיפו 1 מ״ל תמיסת חסימה לכל באר ודגרו במשך שעה בטמפרטורת החדר.
הערה: שלב החסימה יכול להתבצע גם בטמפרטורה של 4°C למשך 16 שעות. - תמיסת חסימת השאיבה ודגר תאים עם נוגדן ראשוני אנטי-E. coli (ראו טבלת חומרים) מדולל (מומלץ לדילול 1:500) בתמיסת חסימה למשך שעה בטמפרטורת החדר.
הערה: דגירה עם הנוגדן הראשי יכולה להתבצע גם בטמפרטורה של 4°C למשך 16 שעות. - שאפו תמיסת נוגדנים ראשונית ומוסיפים 1 מ"ל של 1× PBS + 0.1% בגיל 20. דגרו תאים ב-1× PBS + 0.1% Tween20 למשך 5 דקות. חזור על השלב הזה עוד פעמיים (3 שטיפות בסך הכל).
- דגרו תאים עם נוגדן משני אנטי-ארנב עזים (ראו טבלת חומרים) מדוללים (מומלץ לדילול 1:1000) בתמיסת חסימה למשך שעה בטמפרטורת החדר. עטוף את הפלטת בנייר אלומיניום כדי להגן על הפלואורופור מהאור.
- שאפו את תמיסת הנוגדן המשני והוסיפו 1 מ"ל של 1× PBS + 0.1% Tween20. דגרו תאים ב-1× PBS + 0.1% Tween20 למשך 5 דקות. חזור על השלב הזה עוד פעמיים (3 שטיפות בסך הכל).
- צביעת נגד והתקנת הכיסוי
- כדי לצבוע DNA של מארח וחיידק ואקטין מאכסן, יש להכין דילול משולב באמצעות 10 מ"ג/מ"ל Hoechst (דילול מומלץ ב-1:2000, ראו טבלת החומרים) ורודמין-פאלואידין (דילול מומלץ ב-1:1000, ראו טבלת חומרים) ב-1× PBS.
- הוסף 1 מ"ל תמיסת צבע לכל באר ודגר במשך 10 דקות.
- הסר את תמיסת הצבע והוסף 1 מ"ל של 1× PBS לכל באר. חזור על השלב הזה עוד פעם אחת (2 שטיפות בסך הכל).
- הוסיפו 1 מ"ל של 1× PBS והשאירו תאים שקועים בתמיסה.
- הנח טיפה אחת של מדיום ההתקנה (ראו טבלת חומרים) על השקופית המתוינת.
- הרם בזהירות את הכיסוי מלוח 6 בארות באמצעות מחט מעוקמת והפך את הכיסוי כך שהצד המכיל התאים פונה למחסנית המכילה את מדיום ההרכבה.
- הנח את הכיסוי על מדיום ההרכבה. ודא שמדיום ההרכבה מפוזר באופן שווה לאורך כל הכיסוי.
- דגרו את המחסניות המותקנות בטמפרטורת החדר במהלך הלילה בחושך.
- אטום את קצוות הכיסוי באמצעות לק שקופ ואחסן את הסליידס בטמפרטורה של 4 מעלות צלזיוס בקופסת שקופיות.
- דמיינו את הדגימות המותקנות באמצעות הערוצים המתאימים לצבעים/פלואורופורים המשמשים במיקרוסקופ קונפוקלי.
- קיבוע וחדירות של תאי Caco-2
תוצאות
כדי להעריך את יעילות הטיפול באמיקאצין בהשמדת חיידקים חוץ-תאיים ולהמחשת פלישה תוך-תאית, ביצענו ניסויים בזיהום באמצעות שכבות מונולייריות של תאי Caco-2. כפי שמוצג באיור 1, טיפול בגנטמצין או אמיקאצין לאחר הדבקה ב-E. coli NRG857c (ביקורת חיובית) או E. coli DH5α (ביקורת שלילית) הוביל לפרופילי פלישה דומים. ממצאים אלו מצביעים על כך שאמיקוצין יעיל כמו גנטמצין בהשמדת חיידקים חוץ-תאיים ומשקף במדויק את עומס החיידקים התוך-תאיים, מה שתומך בשימושו כאנטיביוטיקה חלופית לבדיקות פלישה. טווח החלמה של ~4-10% התאוששות של NRG857c ו-<1% עבור E. coli DH5α נחשב מקובל לפרשנות מדויקת של פנוטיפים של פלישה ביחס לזנים מוטנטיים או מבודדים קליניים אחרים, בהתאם לתצפיות קודמות11. אם אחוזי הפלישה עבור הביקורת החיובית והשלילית הם מחוץ לטווח ההתאוששות הצפוי הזה, יש לפרש את התוצאות בזהירות, ויש לחזור על הבדיקה.
כדי להוכיח כי אמיקאצין יכול לכוון ביעילות לבודדי E. coli קליניים עמידים לגנטמיצין, בוצעו במקביל בדיקות הגנה של גנטמיצין ואמיקאצין, ונבדקו פרופילי הפלישה של הבודדים. כפי שמוצג באיור 2, טיפול בבודדים עמידים לגנטמיצין בגנטמצין הניב ערכי החלמה משתנים מאוד, הנעים בין 21.52% ל-2788.50%. לעומת זאת, הטיפול באמיקוסין הפחית באופן דרמטי את ההחלמה בכל הבודדים, מה שהדגיש את יעילותו ואפשר מדידות פלישה מדויקות ואמינות יותר.
לבסוף, כדי להעריך את הפנוטיפ התוך-תאי של AIEC במהלך הפלישה, תאי Caco-2 נדבקו ב-E. coli NRG857c. איור 3 מציג תמונה מייצגת של תא Caco-2 נגוע עם חיידקים (ירוקים) מוצבעים באימונופלואורסצנציה, אקטין מארח (אדום) ו-DNA (כחול) המוצגים על ידי צביעה נגדית עם רודמין-פאלואידין והוכסט, בהתאמה. 4 שעות לאחר ההדבקה, NRG857c נצפה משכפל בציטופלזמה, מתמקם ליד הגרעין ובתוך גבולות האקטין, מה שמאשר את הטבע התוך-תאי של חיידקים אלה.
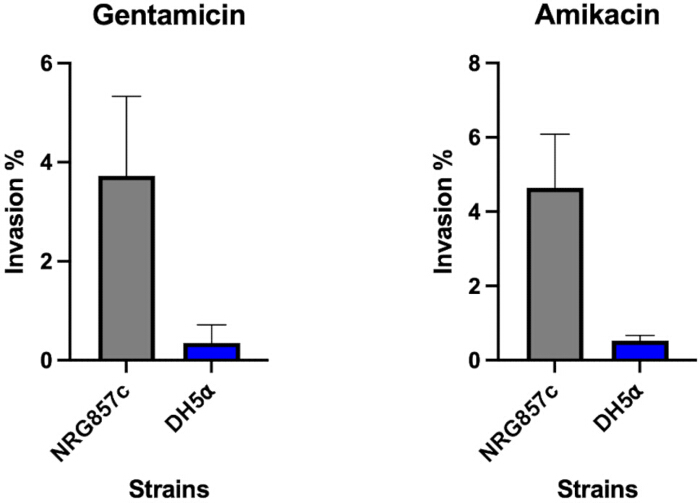
איור 1: הוספת גנטמצין או אמיקאצין לתאי Caco-2 שנדבקו בזן AIEC NRG857c מובילה לפרופילי פלישה דומים. מונולייר של תאי Caco-2 נדבקו בזן AIEC NRG857c וב-E. coli DH5α ב-MOI של 10. לאחר 3 שעות של זיהום, התאים טופלו במשך שעה אחת בגנטמצין (100 מיקרוגרם/מ"ל) או אמיקאצין (240 מיקרוגרם/מ"ל) כדי לחסל חיידקים חוץ-תאיים. תאים עברו פירוק עם 1% טריטון-X-100, והומוגננטים דוללו באופן סדרתי וצופים על אגר LB לצורך ספירת CFU. הפלישה באה לידי ביטוי באחוז החיידקים שהתאוששו יחסית לחינוקולום הראשוני. הנתונים מייצגים שלושה ניסויים עצמאיים (n = 3); פסי שגיאה מציינים סטיית תקן של הממוצע. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
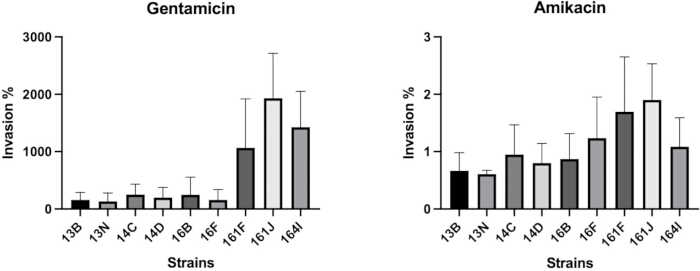
איור 2: אמיקסין מכוון ביעילות לזני E. coli עמידים לגנטמיצין. מונולייר של תאי Caco-2 נדבקו בזני E. coli שבודדו מחולי IBD ב-MOI של 10. לאחר 3 שעות של זיהום, התאים טופלו במשך שעה אחת בגנטמצין (100 מיקרוגרם/מ"ל) או אמיקאצין (240 מיקרוגרם/מ"ל) כדי להשמיד חיידקים חוץ-תאיים. תאים עברו פירוק עם 1% טריטון-X-100, והומוגננטים דוללו באופן סדרתי וצופים על אגר LB לצורך ספירת CFU. הפלישה באה לידי ביטוי באחוז החיידקים שהתאוששו יחסית לחינוקולום הראשוני. הנתונים מייצגים שלושה ניסויים עצמאיים (n = 3); פסי שגיאה מציינים סטיית תקן של הממוצע. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
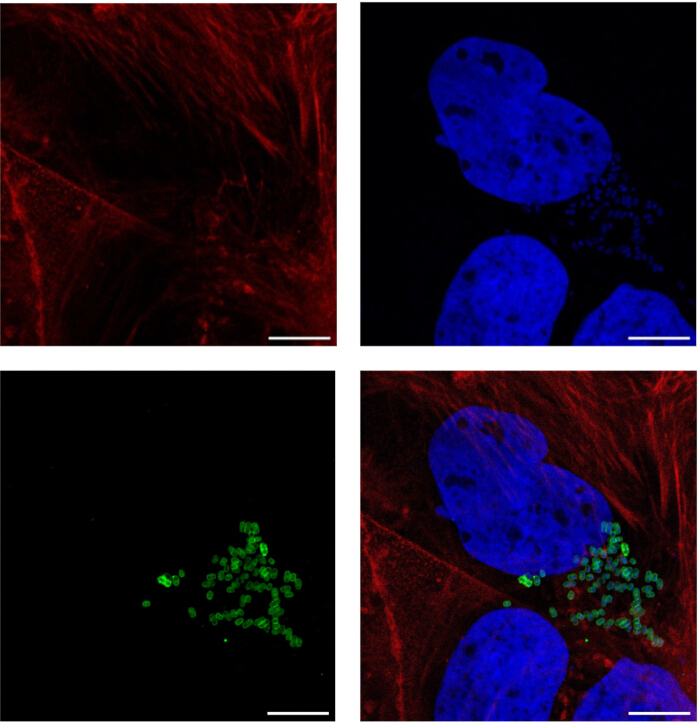
איור 3: המחשה של פלישת תאי אפיתל על ידי E. coli. מיקרוגרפים קונפוקליים מייצגים של תאי Caco-2 הדביקו את E. coli NRG857c. תאי Caco-2 נדבקו במשך 3 שעות ואחריהם דגירה של שעה עם אמיקאצין (240 מיקרוגרם למ"ל). אקטין המארח צופה ברודמין-פאלודין (אדום), ו-DNA המארח והחיידקי צובקו בהוכסט (כחול). E. coli (ירוק) זוהה באמצעות נוגדן ראשוני אנטי-ארנב של E. coli ונוגדן משני אנטי-ארנב Alexa Fluor 488. התמונות צולמו על אובייקטיב בקוטר 63× עם זום של 3× באמצעות מיקרוסקופ קונפוקלי של Leica. פסי קנה מידה = 10 מיקרון. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
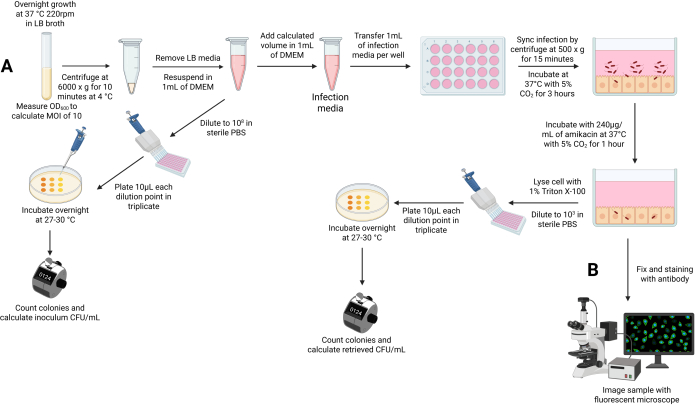
איור 4: תרשים זרימה של המחקר. (א)זני AIEC גודלו במהלך הלילה, נשטפו והתווספו למונולייר של Caco-2 בקצב MOI של 10. לאחר 3 שעות של זיהום ושעה אחת של טיפול באמיקאצין, חיידקים תוך-תאיים הוחזרו וכמותו על ידי ציפוי דילול סדרתי בשלושה כפילים. (ב) שכבות מונולייריות נגועות תוקנו, צולמו בנוגדנים וצולמו באמצעות מיקרוסקופ פלואורסצנטי. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
איור משלים 1: טיפול באמיקאסין מביא לרעילות ציטוטוקסית מינימלית בתאי אפיתל. תאי Caco-2 טופלו בגנטמצין (100 מיקרוגרם/מ"ל) או אמיקאצין (240 מיקרוגרם/מ"ל) למשך שעה. ציטוטוקסיות נקבעה על ידי מדידת הלקטט דה-הידרוגנאז ששוחרר לתוך תווך התרבות. פסי השגיאה מציינים סטיית תקן של הממוצע (n = 3). אנא לחצו כאן להורדת הקובץ הזה.
דיון
מבחן ההגנה של אמיקאצין הוא גישה מותאמת להערכת פלישת E. coli לתאי אפיתל. מספר שלבים קריטיים להצלחת הבדיקה הזו, כולל ציפוי קולגן של הלוחות, שמירה על שלמות השכבה המונו-שכבתית וניתוק תאים יעיל. תאי Caco-2 הם קו תאים דבק שיכול להיצמד לפלסטיק שטופלו בתרבות רקמה וליצור שכבותמונו-שכבות 20. עם זאת, במהלך ההדבקה, שימוש במדיה ללא סרום ושטיפה חוזרת יכולים להשפיע על ניתוק התאים, ולהוביל לייצוג חסר של פלישת חיידקים21. כדי לפתור בעיה זו, ציפוי לוחות ברכיבי מטריצה חוץ-תאיים, כגון קולגן מסוג IV, יכול לקדם את היצמדות התאים ואת יצירת שכבה מונו-שכבה יציבה ומתאחדת במהלך זיהום21. זה חשוב שכן זן AIEC LF82 הוכח כמפריע לצמתים הדוקים במהלך הפלישה, והיווצרות חד-שכבתית לא שלמה יכולה לעקוף שלב זה, מה שמוביל לתוצאות מעוותות22. לבסוף, פירוק תאים יעיל הוא שלב מרכזי נוסף שמשפיע על התאוששות חיידקים, שכן ליזיס לא מלא עלול להסתיר פולשנות, מה שמבלבל את תוצאות הבדיקה23. כדי לעקוף זאת, חשוב להשעות היטב את הליזאט התא לאחר הדגירה עם טריטון-X-100.
בנוסף לאתגרים הטכניים שעשויים לתרום לשונות בבדיקות פלישה, אחוז החיסון שהתאושש לאחר ההדבקה בזן AIEC LF82 נמצא בטווח של 0.61 ל-17.25%8. שונות זו עשויה להיות מושפעת מהיעדר רמזים סביבתיים מסוימים, כגון מלחי מרה, מוצין ומטבוליטים מעיים אחרים במבחן המבחנה, הידועים כתורמים לאלימות AIEC 24,25,26. בפרט, הוכח כי מלחי מרה גורמים לביטוי של פימבריה פולרית ארוכה, שמגבירה את ההיצמדות והטרנסלוקציה של AIEC בין תאי M27. פתוגנים נוספים במערכת העיכול, כגון Vibrio ו-Shigella, ידועים בכך שהם מווסתים את מערכות ההפרשה מסוג III בתגובה למרה כדי לתווך פלישה לתאי אפיתל28,29. תת-גידול עם מלחי מרה להשראת ביטוי גורמי אלימות הוא סטנדרטי בפרוטוקולי הגנה של ג'נטמיצין לפתוגנים אחרים, וגידול AIEC עם רמזים סביבתיים אלו עשוי לייצב את הפלישה ולהניב פרופילים עקביים יותר30,31.
מגבלה נוספת של בדיקה זו היא שפלישת חיידקים מוערכת בנקודת זמן אחת, שלמרות שהיא סטנדרטית בתחום, ככל הנראה מפשטת יתר על המידה את תהליך הפלישה12. פלישה חיידקית היא תהליך דינמי הכולל היצמדות, הפנמה, שכפול תוך-תאי ובריחה מתא המארח32. מכיוון שגנים חדשים התורמים לפלישה ל-AIEC היה מאתגר לזיהוי, שימוש במבחן נקודת זמן אחת עלול לייצג פחות את מספר הגנים התורמים לתהליך זה,12. לכן, נעשה שימוש במבחני פלישה במסלול זמן להערכת התורמים לפלישה ולחקר שכפול AIEC בתאי I-407 ו-Hep-2 8,33. בעוד שהשימוש בבדיקת פלישה במסלול זמן חשוב לאפיון תרומת הגנים הבודדים לפלישה, הוא דורש עבודה רבה, במיוחד בסקר מבודדים קליניים רבים. מסיבה זו, נקודת זמן אחת משמשת להערכת הפלישה.
בנוסף, אורח החיים התוך-תאי של AIEC לא תואר היטב. רוב המחקרים משתמשים באחוז פלישה כקריאה ראשונית לזיהוי שינויים ב-CFU של מוטנטים שונים למחיקת גורמי אלימות14,34. הדמיה של תאי מארח נגועים יכולה לספק תובנות ייחודיות לביולוגיה של AIEC שחסרות כאשר משתמשים רק ב-CFU35. לכן, כדי להעריך באופן מקיף את תפקידם של גנים שונים בפלישת תאים, יש לבצע מיקרוסקופיה אימונופלואורסצנציונית של תאים נגועים במקביל לספירת CFU. זה חשוב כי זה יכול להוביל לזיהוי גנים שפועלים בהישרדות וברח אנדוסומלי, מכוונים לשלד התאי של המארח, או מציגים הבדלים בעומס החיידקים לכל תא, שיכולים להתעלם מהם רק באמצעות התאוששות מ-CFU. חשוב לציין ששימוש בפרוטוקול צביעת אימונופלואורסצנציה המתואר כאן לזיהוי חיידקים תוך-תאיים אינו מבחין בין חיידקים מופנמים באמת לאלו שנדבקו לפני השטח של התא. גישה לצביעה דיפרנציאלית, שבה חיידקים חוץ-תאיים מסומנים בנוגדן משני מובחן לפני הפרמיאביליזציה וחיידקים תוך-תאיים צובעים לאחר הפרמיאביליזציה, תענה על מגבלה זו ויכולה להיות מיושמת במחקרים עתידיים להבחנה ברורה יותר בין אוכלוסיותאלו. 36.
המשמעות של שיטה זו טמונה בעיקר ביכולת לסרוק בודדים של E. coli עמידים לרב-תרופות מחולי IBD שעוברים טיפולים אנטיביוטיים מגוונים11. גנטמיצין משמש לטיפול בחולים עם דלקת מעי דלקתית מוקדמת וניתן לתת אותו לטיפול בזיהומים חיידקיים אחרים37. הופעת מבודדים עמידים לגנטמיצין תמנע את השימוש במבחן הסטנדרטי, מה שהופך את אמיקאצין לחלופה אמינהיותר 11. שימוש בפרוטוקולים המפורטים במאמר זה יאפשר אפיון מעמיק יותר של ביולוגיית הזיהומים ב-AIEC ויסייע בזיהוי גנים חדשים שיכולים לתרום לפלישה. שיטות אלו חשובות בהקשר של פתוגנזה חיידקית ומחקר אינטראקציה בין מארח-פתוגן, שכן הן מאפשרות גילוי גורמי אלימות חדשים, אפיון מחזור החיים התוך-תאי של החיידק, וחקירת מסלולי המארח המיועדים במהלך ההדבקה. בנוסף, הם רלוונטיים באופן רחב לחקר פתוגנים פולשניים אחרים המשתמשים במודלים של תאי אפיתל חוץ-גופיים .
גילויים
המחברים מצהירים שאין ניגוד עניינים.
תודות
עבודה זו נתמכה על ידי יוזמת פתוגנים מתפתחים של מכון הווארד יוז לרפואה (K.O., J.N.), מענק קרן וולש 1-561 (K.O.), קרן Once Upon a Time (K.O.), מענק NIH R35 GM134945 (K.O.), מענק NIH NIDDK K08-DK-123316 (J.N.), פרסי קריירה של קרן Burroughs Wellcome למדענים רפואיים - 1020904 (J.N.) ו-NIH T32 AI007520 (S.F.).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 75 cm2 בקבוק תרבית רקמות | Fisher Scientific | FB012937 | |
| אמיקצין די-סולפט | Research Products International | A20540-25.0 | |
| אנטיביוטיקה-אנטי-מיקוטיקה (100x) | Gibco | 15240062 | |
| נוגדן אנטי-E.coli | Abcam | ab137967 | |
| צלחות מיקרו-בארות BioLite - 6 בארות | Fisher Scientific | 12-556-004 | |
| אלבומין בקר | Sigma-Aldrich | A7906 | |
| קולגן I, זנב חולדה, 100 מג | Corning | 354236 | |
| שקופית ספירת תאים Countess | Invitrogen | C10312 | |
| DMEM, גלוקוז גבוה | Gibco | 11965118 | |
| סרום עוברי בקר | Corning | 35-011-CV | |
| חומצה אצטית גלקציאלית | Sigma-Aldrich | A6283 | |
| גליצין טהור במיוחד | USBiological | G8165 | |
| נוגדן משני עובר עכברוש אנטי-ארנב IgG (H + L) מחוסן צולב, Alexa Fluor 488 | Invitrogen | A-11008 | |
| Hoechst 33342, טרי-הידרוכלוריד טרי-הידרט | Invitrogen | H3570 | |
| Liofilchem MTS אמיקצין [AK] 0.016-256 μg/mL | Fisher Scientific | 22-777-704 | רצועות בדיקת MIC של אמיקצין |
| תמיסת פרפורמלדהיד, 4% ב-PBS | Fisher Scientific | J19943.K2 | |
| PBS, 1x | Corning | 21-040-CV | |
| כיסויי זכוכית גרמניים מצופים פוליל-ליזין סטריליים לתרבית תאים | Neuvitro | NC1327375 | |
| חומר הרכבה נוגד דהייה ProLong gold | Invitrogen | P36934 | |
| רודמין-פאלוידין | Invitrogen | R415 | אדום-כתום 540/565 ננומטר |
| צלחות תרבית רקמות סטריליות מטופלות בפני שטח | Fisher Scientific | FB012929 | צלחות 24 בארות |
| טריטון X-100 (אלקטרופורזה) | Fisher Scientific | BP151-100 | |
| טריפן כחול | Invitrogen | T10282 | |
| טריפסין-EDTA (0.25%), פנול אדום | Gibco | 25200056 | |
| Tween-20 | Fisher Scientific | BP337-100 |
מקורות
- Bruner, L. P., White, A. M., Proksell, S. Inflammatory bowel disease. Prim Care. 50 (3), 411-427 (2023).
- Richard, N., Savoye, G., Leboutte, M., Amamou, A., Ghosh, S., et al. Crohn's disease: Why the ileum?. World J Gastroenterol. 29 (21), 3222-3240 (2023).
- Hracs, L., et al. Global evolution of inflammatory bowel disease across epidemiologic stages. Nature. 642 (8067), 458-466 (2025).
- Lewis, J. D., Abreu, M. T. Diet as a trigger or therapy for inflammatory bowel diseases. Gastroenterology. 152 (2), 398-414.e6 (2017).
- Khan, S., et al. Dietary simple sugars alter microbial ecology in the gut and promote colitis in mice. Sci Transl Med. 12 (567), (2020).
- Ma, X., et al. Gut microbiota in the early stage of Crohn's disease has unique characteristics. Gut Pathog. 14 (1), 46 (2022).
- Vester-Andersen, M. K., et al. Increased abundance of proteobacteria in aggressive Crohn's disease seven years after diagnosis. Sci Rep. 9 (1), 13473 (2019).
- Boudeau, J., Glasser, A. L., Masseret, E., Joly, B., Darfeuille-Michaud, A. Invasive ability of an Escherichia coli strain isolated from the ileal mucosa of a patient with Crohn's disease. Infect Immun. 67 (9), 4499-4509 (1999).
- Darfeuille-Michaud, A., et al. High prevalence of adherent-invasive Escherichia coli associated with ileal mucosa in Crohn's disease. Gastroenterology. 127 (2), 412-421 (2004).
- Barnich, N., et al. Adherent-invasive Escherichia coli in Crohn's disease: the 25th anniversary. Gut. , (2025).
- Kim, J., et al. Genetic and microbial analysis of invasiveness for Escherichia coli strains associated with inflammatory bowel disease. Cell Mol Gastroenterol Hepatol. 19 (4), 101451 (2025).
- Camprubi-Font, C., Martinez-Medina, M. Why the discovery of adherent-invasive Escherichia coli molecular markers is so challenging?. World J Biol Chem. 11 (1), 1-13 (2020).
- Barnich, N., et al. CEACAM6 acts as a receptor for adherent-invasive E. coli, supporting ileal mucosa colonization in Crohn disease. J Clin Invest. 117 (6), 1566-1574 (2007).
- Boudeau, J., Barnich, N., Darfeuille-Michaud, A. Type 1 pili-mediated adherence of Escherichia coli strain LF82 isolated from Crohn's disease is involved in bacterial invasion of intestinal epithelial cells. Mol Microbiol. 39 (5), 1272-1284 (2001).
- Hase, K., et al. Uptake through glycoprotein 2 of FimH(+) bacteria by M cells initiates mucosal immune response. Nature. 462 (7270), 226-230 (2009).
- Chassaing, B., et al. Crohn disease--associated adherent-invasive E. coli bacteria target mouse and human Peyer's patches via long polar fimbriae. J Clin Invest. 121 (3), 966-975 (2011).
- Glasser, A. L., Boudeau, J., Barnich, N., Perruchot, M. H., Colombel, J. F., et al. Adherent invasive Escherichia coli strains from patients with Crohn's disease survive and replicate within macrophages without inducing host cell death. Infect Immun. 69 (9), 5529-5537 (2001).
- Bringer, M. A., Billard, E., Glasser, A. L., Colombel, J. F., Darfeuille-Michaud, A. Replication of Crohn's disease-associated AIEC within macrophages is dependent on TNF-alpha secretion. Lab Invest. 92 (3), 411-419 (2012).
- Ristuccia, A. M., Cunha, B. A. An overview of amikacin. Ther Drug Monit. 7 (1), 12-25 (1985).
- Sambuy, Y., De Angelis, I., Ranaldi, G., Scarino, M. L., Stammati, A., et al. The Caco-2 cell line as a model of the intestinal barrier: influence of cell and culture-related factors on Caco-2 cell functional characteristics. Cell Biol Toxicol. 21 (1), 1-26 (2005).
- Vllasaliu, D., Falcone, F. H., Stolnik, S., Garnett, M. Basement membrane influences intestinal epithelial cell growth and presents a barrier to the movement of macromolecules. Exp Cell Res. 323 (1), 218-231 (2014).
- Wine, E., Ossa, J. C., Gray-Owen, S. D., Sherman, P. M. Adherent-invasive Escherichia coli, strain LF82 disrupts apical junctional complexes in polarized epithelia. BMC Microbiol. 9, 180 (2009).
- Jamur, M. C., Oliver, C. Permeabilization of cell membranes. Methods Mol Biol. 588, 63-66 (2010).
- Delmas, J., et al. Metabolic adaptation of adherent-invasive Escherichia coli to exposure to bile salts. Sci Rep. 9 (1), 2175 (2019).
- Zhang, S., et al. Mucosal metabolites fuel the growth and virulence of E. coli linked to Crohn's disease. JCI Insight. 7 (10), (2022).
- Viennois, E., et al. Dietary emulsifiers directly impact adherent-invasive E. coli gene expression to drive chronic intestinal inflammation. Cell Rep. 33 (1), 108229 (2020).
- Chassaing, B., Etienne-Mesmin, L., Bonnet, R., Darfeuille-Michaud, A. Bile salts induce long polar fimbriae expression favouring Crohn's disease-associated adherent-invasive Escherichia coli interaction with Peyer's patches. Environ Microbiol. 15 (2), 355-371 (2013).
- Gotoh, K., et al. Bile acid-induced virulence gene expression of Vibrio parahaemolyticus reveals a novel therapeutic potential for bile acid sequestrants. PLoS One. 5 (10), e13365 (2010).
- Bajunaid, W., et al. The T3SS of Shigella: Expression, structure, function, and role in vacuole escape. Microorganisms. 8 (12), (2020).
- Poore, K., Lenneman, B. R., Faherty, C. S. Epithelial cell infection analyses with Shigella. J Vis Exp. (204), e66426 (2024).
- Chimalapati, S., Lafrance, A. E., Chen, L., Orth, K. Vibrio parahaemolyticus: Basic techniques for growth, genetic manipulation, and analysis of virulence factors. Curr Protoc Microbiol. 59 (1), e131 (2020).
- Rodrigues, E., Marzook, N. B., Pallett, M. A., Sateriale, A. Convergent mechanisms of epithelial cell structure manipulation by intestinal pathogens. PLoS Pathog. 21 (7), e1013367 (2025).
- Jaishankar, J., et al. A critical role for Vibrio parahaemolyticus LPS to mediate evasion of host immune response during infection. Proc Natl Acad Sci U S A. 122 (33), e2426547122 (2025).
- Cieza, R. J., Hu, J., Ross, B. N., Sbrana, E., Torres, A. G. The IbeA invasin of adherent-invasive Escherichia coli mediates interaction with intestinal epithelia and macrophages. Infect Immun. 83 (5), 1904-1918 (2015).
- Liu, H., Semino-Mora, C., Dubois, A. Mechanism of H. pylori intracellular entry: an in vitro study. Front Cell Infect Microbiol. 2, 13 (2012).
- Heesemann, J., Laufs, R. Double immunofluorescence microscopic technique for accurate differentiation of extracellularly and intracellularly located bacteria in cell culture. J Clin Microbiol. 22 (2), 168-175 (1985).
- Lev-Tzion, R., Ledder, O., Shteyer, E., Tan, M. L. N., Uhlig, H. H., et al. Oral vancomycin and gentamicin for treatment of very early onset inflammatory bowel disease. Digestion. 95 (4), 310-313 (2017).
הדפסות חוזרות והרשאות
