פרוטוקול זה מתאר בדיקת ניידות של חרוזים עם זנב שביתי של אקטין בעוצמה ניתנת לכוונון, במטרה לחקור באופן כמותי כיצד פעילות מנועי מיוזין משפיעה על הרכבת אקטין מסועף ועל ארכיטקטורת הרשת בממשק דמוי ממברנה.
מאמר שיטה
שחזור הרכבת אקטין מסועבת המתווכת על ידי Myosin-I במערך בדיקה לתנועת זנב-שביט של אקטין מבוסס חרוזיים
במאמר זה
סיכום
תקציר
פולימריזציה של אקטין מסועף המתווכת על ידי קומפלקס החלבון הקשור לאקטין 2/3 (Arp2/3) מספקת את כוחות הדחיפה העיקריים למגוון תהליכים תאיים, כולל נדידת תאים, אנדוציטוזה ופגוציטוזה. מנועי Myosin-I, אשר ממוקמים לעיתים קרובות יחד עם רשתות אקטין מסועפות בקצה המוביל של התא, הוכחו אף הם כמשתתפים בתהליכים אלו ונחשבים כמי שמסדירים את ארגון רשת האקטין ואת התפוקה המכנית. עם זאת, המנגנונים המולקולריים שדרכם Myosin-I מקשר עם קומפלקס Arp2/3 כדי לווסת את הרכבת האקטין המסועף ויצירת כוחות נותרו במידה רבה לא ידועים. כאן, אנו מתארים בדיקת ניידות של חרוזי "זנב-שביט" (comet-tail) של אקטין in vitro בעלת יכולת כיוונון גבוהה, המשחזרת את הגומלין בין Myosin-I, אקטין וקומפלקס Arp2/3 בקצה המוביל של התא על פני שטחם של חרוזים בגודל מיקרוני. שיטה זו מותאמת מבדיקות זנב-שביט של אקטין מבוססות על ידי קיבוע משותף של Myosin-I עם גורמים מקדמי גרעין (NPFs) על פני השטח של החרוזים, ובכך יוצרים ממשק הרכבת אקטין דמוי-ממברנה. הבדיקה מאפשרת ויזואליזציה וניתוח כמותי של הרכבת רשת האקטין, צפיפות הרשת, ניידות החרוזים ויעילות הצמיחה. היא מספקת גם מדדים איכותיים עקיפים של הגברת כוח המתווכת על ידי Myosin-I ברשתות אקטין מסועפות. פרוטוקול זה כולל פונקציונליזציה של חרוזים, הרכבת התגובה, דימוי פלואורסצנציה, ניתוח תמונה כמותי ואסטרטגיות לפתרון בעיות, ובכך מספק פלטפורמה הדירה לחקר הרכבת אקטין המוסדרת על ידי Myosin-I בממשקים דמויי-ממברנה.
מבוא
פולימריזציה של אקטין מסועף המתווכת על ידי קומפלקס החלבון Arp2/3 (actin-related protein 2/3) יוצרת את כוחות הדחיפה הראשוניים המניעים תהליכים תאיים מגוונים, הכוללים ניידות תאית, אנדוציטוזה, פגוציטוזה ויצירת קומפלקסים של היצמדות תאית1,2,3,4,5,6. בקצה המוביל של תאים נודדים, גורמים מקדמי גרעין (nucleation-promoting factors; NPFs) מפעילים את קומפלקס Arp2/3 בממברנת הפלזמה, ובכך יוזמים הרכבה של רשת אקטין דנדריטית הדוחפת את הממברנה קדימה. מנועי Myosin-I נמצאים לעיתים קרובות במיקום משותף עם רשתות אקטין מסועפות אלו בממשקי ממברנה, והם מעורבים בוויסות של ארגון האקטין ובבקרת ייצור כוח7,8,9,10,11,12,13. למרות עדויות מצטברות לכך ש-myosin-I תורם לתהליכים מכניים תלויי-אקטין, המנגנונים המולקולריים שבאמצעותם myosin-I מקייים אינטראקציה עם הרכבת אקטין מסועף המתווכת על ידי Arp2/3 כדי לווסת את ארכיטקטורת הרשת ואת התוצר המכני, נותרו לא understood היטב.
כדי לגשר על פער זה, שילבנו myosin-I במערכת המוכרת של תנועת חרוזי זנב-שביט מאקטין (actin comet-tail bead motility system)14,15,16,17, כדי לשחזר את הגומלין בין myosin-I, own actin וקומפלקס Arp2/3 על פני שטח של חרוזים בגודל מיקרוני. המטרה הכללית של שיטה זו היא לחקור באופן כמותי כיצד הצימוד בין myosin למאקטין משפיע על הרכבת מאקטין מסועף, ארכיטקטורת הרשת, שבירת סימטריה ותנועת חרוזים בממשק דמוי-ממברנה. בתבחנה זו, myosin-I ו-NPFs מצופים במקביל על חרוזים בקנה מידה מיקרוני כדי לחקות את הלוקליזציה המשותפת שלהם בממברנת הפלסמה18. עם תחילת הפולימריזציה, NPFs הקשורים לפני השטח מעבבים הרכבת מאקטין מסועף התלויה ב-Arp2/3, מה שמוביל להיווצרות מעטפת מאקטין, שבירת סימטריה ופיתוח של זנב-שביט מקוטב המניע את החרוז קדימה14,19,20,21,22,23. על ידי שינוי שיטתי של צפיפות ה-myosin על פני השטח18 וויסות צפיפות רשת המאקטין באמצעות ריכוז חלבון סגירה (CP)15,19,24, שיטה זו מאפשרת ניתוח כמותי של קינטיקת הרכבת המאקטין, יעילות הצמיחה, ארכיטקטורת הרשת ותנועת החרוזים, ובכך מספקת מדדים עקיפים הקשורים לשינויים בתפוקה המכנית התלויים ב-myosin-I.
הבדיקה מציעה גם יתרונות מובהקים על פני גישות משלימות. בהשוואה לבדיקות פולימריזציה בכמות גדולה (bulk polymerization), כגון בדיקות פירן-אקטין (pyrene-actin), מערכת תנועת החריסים זו מאפשרת ויזואליזציה ישירה של הרכבת אקטין מסועף ותנועת חריסים המונעת מפולימריזציית אקטין. בניגוד למחקרים תאיים, שבהם תפקודי חלבון חופפים וסביבות תאיות מורכבות עלולים להסתיר תרומות 개별יות ולסבך את הפרשנות, בדיקה זו מספקת שליטה מדויקת על הרכב החלבונים, הריכוז וארגון הפני השטח, ובכך מאפשרת חקירה שיטתית של האופן שבו myosin-I מקייים אינטראקציה עם הרכבת אקטין המתווכת על ידי Arp2/3 תחת תנאים ביוכימיים מוגדרים.
שיטה זו היא המתאימה ביותר לחקר האופן שבו רכיבי השלד התאי מתואמים בממשק דמוי-ממברנה כדי לווסת את ארכיטקטורת רשת האקטין ואת התוצר המכני. למרות שהפרוטוקול הנוכחי מותאם להרכבת אקטין מסועף המתווכת על ידי myosin-I, ניתן להתאים את התכנון המודולרי שלו בעתיד כדי לבחון מחלקות אחרות של מיוזין הקשורות לממברנה (למשל, myosin VI, VII, X, XV, ו-XIX) ו/או חלבוני קישור לאקטין (למשל, formins, vasodilator-stimulated phosphoprotein (VASP), cortactin, coronin, או tropomyosin). התאמות כאלה ידרשו תיקוף של קיבוע החלבון, פעילותו וצפיפותו על פני השטח. בנוסף, הבדיקה מתאימה לאסטרטגיות סימון מסוג pulse-chase. שילוב של אקטין photoconvertible או photoactivatable, או תתי-יחידות מסומנות של Arp2/3, עשוי לאפשר מדידה של קצב תחלופת סיבים וקצבי התנתקות של הסתעפויות בתוך הרשת הגדלה25. באופן כללי, בדיקה זו מספקת פלטפורמה רב-גונית לבחינת האינטראקציה המולקולרית בין מנועים הקשורים לממברנה, סיבי אקטין וחלבוני קישור לאקטין, כמו גם לבדיקה כיצד מנועים וחלבוני קישור לאקטין מווסתים את עיצוב הרשת מחדש ואת יצירת הכוח בממשקים דמויי-ממברנה14,15,26,27,28,29,30,31,32,33,34. במובן רחב יותר, היא משמשת גם כפלטפורמת חומר פעיל (active matter) מינימלית וניתנת לכיוונון לחקירת העקרונות הפיזיקליים העומדים בבסיס דינמיקה של מצב שאינו שיווי משקל המונעת על ידי מנועים, כגון שבירת סימטריה, ארגון עצמי, משוב מכנו-כימי והתנהגויות מתהוות אחרות ברשתות אקטומיוזין פעילות18,19,20,21,22,23,35,36, עם רלוונטיות פוטנציאלית לפיזיקה של חומר פעיל ולהנדסת חומרים.
פרוטוקול
פרוטוקול זה פותח על ידי שילוב של myosin-I במערכת המוכרת של תנועת חרוזי זנב-שביט של אקטין14,15,16,17, כדי לחקות ולחקור את תפקידו של myosin-I בוויסות הרכבת אקטין מסועף ויצירת כוח בחזית התקדמות התא. הוא נועד להשלים את מאמר המחקר הראשוני המקורי (Xu et al.18) על ידי אספקת הפרטים הניסיוניים, זרימת העבודה של הניתוח, אסטרטגיות לפתרון בעיות והמגבלות הדרושות לשחזור והתאמה של הבדיקה. פרוטוקול זה משתמש ב-Myo1d של Drosophila ביוטינילי ביטוי מלא, כיוון שהוא פועל בצורה אופטימלית ב-20°C–22°C37,38, הטמפרטורה השגורה ברוב בדיקות השחזור in vitro. תיאור מפורט של הליכי הביוטיניליציה והטיהור של המיוזין ניתן למצוא במחקרים קודמים18,38,39,40.
1. הכנת תמיסות בופר
- הכינו X buffer לציפוי חרוזים ב-neutravidin ו-NPF עם 10 mM 4-(2-hydroxyethyl)-1-piperazineethanesulfonic acid (HEPES; pH 7.5), 100 mM KCl, 1 mM MgCl₂, 100 µM CaCl₂, ו-1 mM adenosine triphosphate (ATP).
- הכינו M buffer לציפוי חרוזים במיוזין עם 20 mM HEPES (pH 7.5), 100 mM KCl, 1 mM MgCl₂, 1 mM ethylene glycol-bis(β-aminoethyl ether)-N,N,N′,N′-tetraacetic acid (EGTA), ו-2 mM ATP.
- להכנת X buffer או M buffer, הכינו תחילה תמיסת מלאי (stock solution) של HEPES המותאמת ל-pH 7.5 בטמפרטורת החדר. הוסיפו KCl, MgCl₂, CaCl₂ (עבור X buffer) או EGTA (עבור M buffer), ולאחר מכן ATP, והשלימו את נפח הבאפר לנפח הסופי באמצעות מים מזוקקים פעמיים (double-distilled water).
- סננו את הבאפר דרך מסנן מזרקה של 0.22 µm לפני השימוש. ניקוי גזים (degassing) אינו נדרש עבור ניסויי ציפוי חרוזים שגרתיים. שמרו את הבאפר המסונן על קרח עד לשימוש.
הערה: הכינו תמיד באפרים המכילים ATP או dithiothreitol (DTT) טריים לקבלת תוצאות אופטימליות. שמרו X buffer ו-M buffer שהוכנו טריים על קרח למשך עד 3–4 ימים.
- הכינו תמיסת מלאי של 100 mg/mL bovine serum albumin (BSA) במים מזוקקים פעמיים לצורך חסימה (blocking). סננו את התמיסה דרך מסנן מזרקה של 0.22 µm, חלקו למנבים של 50 µL ושמרו את המנבים ב-−80°C. השתמשו במנבים תוך 3–6 חודשים והימנעו ממחזורי הקפאה והפשרה חוזרים.
- הכינו את באפרי האחסון של החרוזים.
- הכינו את באפר האחסון לחרוזי ביקורת על ידי דילול של תמיסת המלאי של 100 mg/mL BSA פי 100 ב-X buffer כדי לקבל 1 mg/mL BSA ב-X buffer.
- הכינו את באפר האחסון לחרוזי מיוזין על ידי דילול של תמיסת המלאי של 100 mg/mL BSA פי 100 ב-M buffer כדי לקבל 1 mg/mL BSA ב-M buffer.
- הכינו 2× motility buffer המכיל 40 mM HEPES (pH 7.5), 200 mM KCl, 2 mM MgCl₂, 2 mM EGTA, ו-0.4% methylcellulose (צמיגות: 1500 cP). שמרו את הבאפר ב-4°C למשך עד חודש אחד. ערבבו בעדינות לפני השימוש כדי להבטיח הומוגניות ולהימנע מהחדרת בועות.
אזהרה: טיפלו בכל הכימיקלים בהתאם לנהלי הבטיחות במעבדה של המוסד. ענדו ציוד מגן אישי מתאים במהלך הכנת הבאפרים.
2. הכנת חרוזי הניקוי
הערה: יש לצפות חרוזי פוליסטירן קרבוקסילאטיים (בקוטר 2.0-µm) ב-NPFs וב-neutravidin לפי פרוטוקולים שפורסמו בעבר14,15,16,17, עם התאמות לציפוי מיוזין18. השתמשו בדומיין WCA עם תג glutathione S-transferase (GST) מתוך חלבון Wiskott–Aldrich syndrome protein נוירונלי אנושי (N-WASP) כ-NPF (GST-VCA). הפרוטוקול להלן נועד להכין 50 µL של תמיסת חרוזים (bead slurry) וניתן להרחיבו ל-100–200 µL לפי הצורך.
- ציפוי Neutravidin ו-NPF
- הכינו 50 µL תערובת ציפוי של NPF ו-neutravidin על ידי ערבוב 5 µL של GST-VCA (בריכוז של 1 מג/מ"ל), 10 µL של Neutravidin בריכוז הרצוי, ו- 35 µL מבופר X. ערבבו בעדינות באמצעות שאיבה והזרקה (pipetting) למעלה ולמטה 5–10 פעמים, תוך הימנעות מיצירת בועות.
הערה: השתמש בריכוזי ה-neutravidin הבאים כדי להשיג יחסי ציפוי שונים של myosin ל-NPF18: 8.3 µM (0.5 mg/mL) עבור יחס מולרי של מיוזין:NPF של 0.28:1; 16.7 µM (1 מג/מ"ל) עבור יחס מולרי של מיוזין:NPF של 0.35:1; 33.3 µM (2 mg/mL) עבור יחס מולרי של מיוזין:NPF של 0.43:1; ו- 83.3 µM (5 מ"ג/מ"ל) עבור יחס מולרי של מיוזין:NPF של 0.80:1. בחרו את ריכוז הניוטראווידין (neutravidin) בהתאם ליחס הציפוי הרצוי של מיוזין ל-NPF. עבור ניסויי מוטיליות של "זנב שביט" (comet-tail) סטנדרטיים, השתמשו ביחס של 0.43:1 בין מיוזין ל-NPF, המספק ציפוי מיוזין חסון תוך שמירה על צפיפות NPF מספיקה להרכבת אקטין תלוית Arp2/3. ניתן להשתמש ביחסים נמוכים יותר (0.28:1 או 0.35:1) כדי להעריך צפיפויות שטח נמוכות יותר של מיוזין, בעוד שיחס של 0.80:1 יכול לשמש לבחינת טעינת מיוזין גבוהה יותר. מכיוון שהעלאת ריכוז הניוטראווידין עלולה לשנות הן את גיוס המיוזין והן את צפיפות השטח האפקטיבית של NPF, יש לתקף את יחס הציפוי באמצעות אלקטרופורזה של ג'ל פוליאקרילאמיד בנוכחות סודיום דודציל סולפט (SDS-PAGE) (ראו סעיף 2.3) או באמצעות מדידות צפיפות שטח מבוססות פלואורסצנציה בעת התאמת הבדיקה להכנות חלבון או לתנאי ניסוי חדשים. - העברה 5 µL של תמיסת חרוזיים (bead slurry) למבחנה למיקרוצנטריפוגה. שטפו את החרוזיים עם 10 µL מבופר X על ידי פיפוט לפחות חמש פעמים. שקע את החרוזים באמצעות צנטריפוגה במהירות של 16,000 × ג במשך 2 דקות ב- 4°Cהסיר בזהירות את הנוזל העליון (supernatant) על ידי הטיית המבחנה ושאיבה מהצד הנגדי למשקע החרוזיים (bead pellet).
- שחזר את החרוזים השטופים ב- 50 µL של תערובת הציפוי. ערבבו את הסספנזיה באמצעות פיפוט עדין, והשאירו בתוכה בועת אוויר קטנה כדי להקל על הערבוב במהלך הדגירה. דגרו את החרוזיים ברוטטור שולחני במהירות של 20 סל"ד למשך שעתיים ב- 4°Cשקיעו את החרוזים על ידי סנטריפוגציה במהירות של 16,000. × ג' במשך 2 דקות ב- 4°C והסר בזהירות את העליון (supernatant) המכיל ניוטראווידין (neutravidin) ו-GST-VCA בעודף.
- השביה מחדש את החרוזים המצופים ב-200–400 µL של 10 mg/mL BSA, שהוכנה על ידי דילול תמיסת המקור של BSA בריכוז 100 mg/mL בבופר X. דגרו את התרחף על קרח למשך 30 דקות כדי לחסום אתרי קישור שאינם תפוסים על פני החרוד. השקיפו את החרודים באמצעות סנטריפוגציה ב-16,000 × ג׳ במשך 2 דקות ב- 4°C והסר בזהירות את הנוזל העליון (supernatant).
- שחזר את החרוזים ב- 50 µL של 1 מ"ג/מ"ל BSA שהוכנח בבופר X. שקיעו את החרוזים על ידי סנטריפוגציה ב-16,000 × ג' במשך 2 דקות ב- 4°Cהסר בזהירות את הנוזל העליון, וחזור על השטיפה פעמיים.
הערה: לאחר תגובת הציפוי, יש לערבב בעדינות את החרוזיים על ידי פיפוט למעלה ולמטה 5–7 פעמים, תוך הימנעות מיצירת בועות. תרחיף החרוזיים צריך להיראות מפוזר היטב, ללא אגרגטים או גושים נראים לעין. אין להשתמש בדגימות חרוזיים המראות אגרגציה נרחבת, התפזוריות לקויה או אובדן בולט של חרוזיים, שכן תנאים אלה עלולים להוביל לציפוי לא אחיד ולפגיעה בחזרתיות של הבדיקה. - יש לשמור את החרו지를 המצופים ב-BSA בריכוז 1 מג/מ"ל שהוכן בבופר X, על קרח. יש להשתמש בחרוזים המצופים בתוך שבוע אחד.
הערה: יש לאחסן את החרוזים המצופים על קרח ב-BSA בריכוז של 1 מ"ג/מ"ל שהוכן בבופר X, למשך עד שבוע, לפני המעבר לסימון פלואורסצנטי או לקישוט במיאוזין. לפני השימוש, יש להשעות מחדש את החרוזים בעדינות באמצעות פיפטות ולבדוק חזותית את התוך עבור אגרגציה, השעיה לקויה או אובדן ניכר של חרוזים. אין להשתמש בתכשירים של חרוזים המראים אגרגציה נרחבת או השבה לקויה לאחר האחסון.
- הכינו 50 µL תערובת ציפוי של NPF ו-neutravidin על ידי ערבוב 5 µL של GST-VCA (בריכוז של 1 מג/מ"ל), 10 µL של Neutravidin בריכוז הרצוי, ו- 35 µL מבופר X. ערבבו בעדינות באמצעות שאיבה והזרקה (pipetting) למעלה ולמטה 5–10 פעמים, תוך הימנעות מיצירת בועות.
- סימון פלואורסצנטי וקישוט מיוזין בביוטין
- החליפו את בופר האחסון X בבופר M לפני ציפוי המיוזין.
- חלק 50 µL של חרוזי Neutravidin-NPF באופן שווה לשני מבחנות מיקרו-צנטריפוגה (25 µL לכל מבחנה).
- שקיע את החרוזיים באמצעות סנטריפוגציה במהירות של 16,000 × ג במשך 2 דקות ב- 4°C והסר בזהירות את הנוזל העליון (supernatant). שטוף את החרוזיים באמצעות 25 µL של 1 מ"ג/מ"ל BSA שהוכן בבופר M. שקיעו את החרוזיים על ידי צנטריפוגציה במהירות של 16,000 × ג במשך 2 דקות ב- 4°Cהסר בזהירות את הנוזל העליון (supernatant), וחזור על השטיפה פעמיים.
- השHה שוב את חרוזי הביקורת ב- 25 µL של 1 µM צבע פלואורסצנטי biotin-CF640 המדולל מהתמיסה הריכזית (stock solution) בבופר M.
- השעה מחדש את חרוזי המיוזין ב- 25 µL של 500 nM – 1 µM מיוזין ביוטינילי עם תוספת של 1–5 µM קלמודולין.
- כסו את המבחנות בנייר אלומיניום והדגירו את תרחיפי החרוצים על קרח למשך 30 דקות לפחות. שקיעו את החרוצים באמצעות סרכזה במהירות של 16,000 × ג' במשך 2 דקות ב- 4°C והסר בזהירות את העלייה (supernatant) המכילה מיוזין ביוטינילי (biotinylated myosin) או צבע פלואורסצנטי בעודף.
- שטפו את החרו지를 המקושטים באמצעות 25 µL של 1 מ"ג/מ"ל BSA שהוכנה בבופר M. שקיעה של החרוזים באמצעות צנטריפוגציה במהירות 16,000 × ג' במשך 2 דקות ב- 4°Cהסר בזהירות את הנוזל העליון (supernatant), וחזור על פעולת השטיפה פעמיים.
- יש לשמור את החרוזים המצופים בצבע פלואורסצנטי באורך גל אדום-רחוק (far-red) או את החרוזים המצופים במיוזין ב-BSA בריכוז 1 מ"ג/מ"ל שהוכן בבופר M, על קרח. יש להוסיף לחרוזים המצופים במיוזין 1–5 µM קלמודולין, והגנו את כל החרוזיים המצופים מפני אור על ידי כיסוי המבחנות בנייר אלומיניום. השתמשו בחרוזיים המצופים בצבע פלואורסצנטי באורך גל אדום-רחוק תוך שבוע, ובחרוזיים המצופים במיוזין תוך 2–3 ימים.
הערה: השתמש ב-500 nM – 1 µM מיוזין ביוטינילי לקישוט חרו지를. בחרו את ריכוז העבודה בהתאם ליחס המיוזין הרצוי על פני השטח ולהפעילות של תרשומת המיוזין. עבור ניסויי ניידות סטנדרטיים של חרוזים, השתמשו ב- 1 µM מיוזין ביוטינילי (biotinylated myosin) כדי לעודד קישוט מיוזין חזק בתנאי הציפוי המתוארים לעיל. ניתן להשתמש בריכוזים נמוכים יותר, כגון 500 nM, כאשר יש לצמצם את צפיפות המיוזין על פני השטח או כאשר בוחנים תכשירי חלבון חדשים. יש לאמת את צפיפות המיוזין הסופית על פני השטח באמצעות SDS-PAGE (ראה סעיף 2.3), מדידות מבוססות פלואורסצנציה, או השוואה לתנאי ציפוי שכוילו בעבר בעת התאמת הבדיקה. יש להוסיף קלמודולין בעודף מולרי ביחס למיוזין כדי לשמור על תפוסת זרוע המנוף (lever-arm occupancy) של מיוזין-I במהלך קישוט החרוזיקים. עבור ניסויים סטנדרטיים, השתמש ב-1–5 µM קלמודולין יחד עם 500 nM – 1 µM מיוזין. השתמשו בקצה העליון של טווח זה כאשר משתמשים בריכוזי מיוזין גבוהים יותר. ייתכן שיהיה צורך להתאים את ריכוז הקלמודולין האופטימלי עבור איזופורמים שונים של מיוזין-I או עבור תכשירי חלבון שונים. זמן האחסון השימושי של חרוזים מצופים במיוזין עשוי להשתנות בהתאם לפעילות הנותרת של מולקולות המיוזין המקובעות. ביצועים מיטביים מושגים בדרך כלל כאשר משתמשים בחרוזים מיד לאחר הציפוי. יש לאחסן את החרוזים המצופים על קרח, במיגון מאור, עד למועד השימוש. לפני שימוש בחרוזים מצופים מאוחסנים, השביחו בעדינות את תרחיף החרוזים על ידי פיפטינג למעלה ולמטה 5–7 פעמים, ובדקו מנה קטנה באמצעות מיקרוסקופיית אור או פלואורסצנציה. תכשירי חרוזים מתאימים צריכים להישאר מפוזרים היטב, להראות מינימום אגרגציה, ולשמור על פלואורסצנציה גלויה ואחידה יחסית כאשר קיימים סמני פלואורסצנציה. צבירים קטנים המכילים שלושה עד חמישה חרוזים הם מקובלים; עם זאת, אין להשתמש בתכשירים המראים אגרגציה נרחבת, שביבוב (resuspension) לקוי, פלואורסצנציה חלשה, אובדן בולט של חרוזים או הידבקות מוגברת של חרוזים לדופן המבחנה. עבור חרוזים מצופים במיוזין, יש לוודא את ביצועי הבדיקה על ידי השוואה לתכשירי חרוזים שתוקפו בעבר, מכיוון שהאחסון עלול להפחית את פעילות מולקולות המיוזין המקובעות. אין להשתמש בתכשירי חרוזים שאינם מראים עוד את ההבדלים הצפויים בין חרוזים מצופים במיוזין לחרוזי ביקורת.
- החליפו את בופר האחסון X בבופר M לפני ציפוי המיוזין.
- קביעת יחס הציפוי של מיוזין ל-NPF
- העברה 20 µL של תרחוף חרוזי מכל סוג חרוז (חרוזי בקרה וחרוזי מיוזין) אל מבחנות מיקרו-צנטריפוגה נפרדות. השקיעו את החרוזים באמצעות צנטריפוגה במהירות של 16,000 × g למשך 2 דקות ב- 4°C והסר בזהירות את הנוזל העליון (supernatant). שטוף את החרו지를 עם 25 µL של באפר M. שקע את החרוזים באמצעות סריפוגציה במהירות של 16,000 × g למשך 2 דקות ב- 4°Cהסיר בזהירות את הנוזל העליון (supernatant), וחזור על השטיפה פעם אחת כדי להסיר BSA מתוך תמיסת האחסון.
הערה: הסרה נאותה של BSA מושגת על ידי ביצוע שני שטיפות עוקבות עם באפר M והסרה זהירה של העל-משקע לאחר כל שלב של צנטריפוגה, מבלי להפריע למשקע החרוזים. אם קיים חשד לזיהום של שאריות BSA, יש לבצע שטיפה נוספת עם באפר M לפני הוספת באפר דגימות SDS. יש להימנע מהכנות חרוזים עם שחזור משקע דל או אובדן חרוזים מוגבר, שכן שחזור חרוזים שאינו עקבי עלול להשפיע על דיוק יחס ציפוי המיוזין כפי שנקבע ב-SDS-PAGE. - שחזר את החרוזיים השטופים ב- 20 µL מתוך 1× בפר מהדגם של להמלי (Laemmli sample buffer). הרתיחו את הדגימות למשך 5 דקות. שקיעו את החרוזים באמצעות סבב במיקרוצנטריפוגה שולחנית למשך 15 שניות. שמרו את הדגימות בטמפרטורה של −20°C עד לאלקטרופורזה של ג'ל.
הערה: יש לאחסן את דגימות החרו지를 שהוכנו בטמפרטורה של −20°C עד להכנה לאלקטרופורזה. - הכינו את סדרת סטנדרטי ה-BSA על ידי ערבוב 5 µL של סטנדרט BSA בריכוז של 2 מ"ג/מ"ל עם 5 µL מתוך 2× בופר לדגימות. הרתיחו את התערובת למשך 5 דקות. דללו את התערובת פי 20 עם 1× בופר דגימה כדי להגיע לריכוז סופי של 50 נ"ג/µL.
- טעינה 1 µL של תמיסת סטנדרט ה-BSA המדולל כדי להגיע ל-50 ננוגרם של חלבון כולל.
- טעינה 2 µL של תמיסת הסטנדרט המדוללת של BSA כדי להגיע ל-100 ננוגרם של חלבון כולל.
- טעינה 5 µL של תמיסת ה-BSA הסטנדרטית המדוללת, כדי להגיע ל-250 ננוגרם של חלבון כולל.
- טעינה 10 µL מהסטנדרט של BSA המדולל כדי לקבל 500 ננוגרם של חלבון כולל.
- טעינה 20 µL מתוך תמיסת התקן המדוללת של BSA כדי להשיג 1,000 ננוגרם של חלבון כולל.
- הכינו את התמיסות הסטנדרטיות של neutravidin, GST-VCA ומיאוזין (myosin) על ידי ערבוב 5 µL מכל תמיסת חלבון בריכוז 1 מ"ג/מ"ל עם 5 µL מתוך 2× בופר דגימה להשגה של ריכוז סופי של 0.5 mg/mL. הרתיחו את הדגימות למשך 5 דקות והטעינו 2 µL מכל דגימה כדי להשיג 1 µg חלבון לכל נתיב.
- העמיסו את הדגימות על ג'ל פוליאקרילאמיד במדרג ריכוזים של 4%–20%.
- טעינה 5 µL של סולם החלבונים הצבוע מראש.
- טעינה 2 µL של תמיסת סטנדרט neutravidin בריכוז 0.5 מ"ג/מ"ל.
- טעינה 2 µL של סטנדרט GST-VCA בריכוז 0.5 מ"ג/מ"ל.
- טעינה 2 µL של תמיסס המיוסין הסטנדרטי בריכוז 0.5 מ"ג/מ"ל.
- טעינה 20 µL של כל דגימת חרוד לנתיבים נפרדים.
- העמיסו את תכלילי ה-BSA שהוכנו בשלבים 2.3.3.1–2.3.3.5.
- הריצו את הג'ל ב-1× בופר הרצה ל-SDS-PAGE במתח של 110 V למשך 30 דקות.
זהירות: מתנול וחומצה אצטית המשמשים בתמיסת הסרת הצבע הם חומרים דליקים ומססים (corrosive). יש לטפל בריאגנטים אלו תוך שימוש בציוד מגן אישי מתאים ובהתאם לנהלי הבטיחות המעבדתיים של המוסד. - צבע את הג'ל ב-Coomassie Brilliant Blue למשך 10 דקות תוך כדי נעירה עדינה. הסר את הצבע מהג'ל במהלך הלילה בתמיסה המכילה 10% מתנול ו-7.5% חומצה אצטית. רכוש תמונות של הג'ל באמצעות מערכת לדימוי ג'לים.
הערה: לצורך ניתוח דנסیتומטרי, רכשו תמונות באמצעות הגדרות חשיפה השומרות על כל פסי החלבון בטווח הגילוי הליניארי. הימנעו מתמונות עם חשיפת יתר שבהן פסי המיוזין, ה-NPF או פסי חלבוני הסטנדרט מופיעים כרוויים. במידת האפשר, השתמשו במצב חשיפה אוטומטי המותאם למניעת רוויה, או רכשו תמונות בזמני חשיפה שונים והשתמשו בחשיפה הקצרה ביותר המאפשרת הפרדה ברורה של כל הפסים הרלוונטיים ללא פיקסלים רוויים. השתמשו בהגדרות הדמיה זהות עבור כל הג'לים שיושוו באופן כמותי. - כמתי את עוצמת הפסים באמצעות תוכנה לניתוח תמונות (Fiji/ImageJ) וכלי ה-Gel Analysis.
- פתחו את תמונת הג'ל ב-Fiji. במידת הצורך, המירו את התמונה לגווני אפור ב-8 ביט על ידי בחירה ב-Image > סוג > 8 סיביות.
- במידת הצורך, הפכו את התמונה כך שפס protein יופיעו כפיקים, על ידי בחירה ב-Edit > הפוך.
- השתמשו בכלי הבחירה המלבני כדי לצייר אזור עניין (ROI) סביב הנתיב הראשון, תוך הבטחה שאזור העניין כולל את כל האזור האנכי המכיל את הפסים הרלוונטיים. בחרו ב-Analyze. > ג'לים > בחר את הנתיב הראשון.
- הזיזו את אותה תחום עניין (ROI) מלבני לנתיב הבא ובחרו ב-Analyze > ג'לים > בחר בנתיב הבא (Next Lane). חזור על פרוצדורה זו עבור כל סטנדרטי ה-BSA, סטנדרטי החלבון המזוהה ודגימות החרוגים, תוך שימוש באותו גודל ROI.
- לאחר בחירת כל הנתיבים, יש להפיק פרופילי עוצמה על ידי בחירה ב-Analyze > ג'לים > נתיבי פלוט.
- השתמשו בכלי הקו הישר (straight-line tool) כדי להגדיר את קו הבסיס עבור כל שיא, ולאחר מכן השתמשו בכלי המטה (wand tool) כדי לבחור את שטח השיא המתאים לכל פס רצועה רלוונטי. רשמו את שטח השיא המשולב עבור כל פס.
- בצעו תיקון רקע על ידי שרטוט קו הבסיס באופן עקבי עבור כל נתיב, תוך שימוש ברקע המקומי הסמוך ביותר לשיא, תוך הימנעות מרצועות שכנות או מאזורים לא אחידים בג'ל. יישמו את אותם קריטריונים לבחירת קו הבסיס והשיא על כל הדגימות של התקנים והחרוזיים.
- ייצרו עקומת סטנדרט באמצעות סטנדרטים של BSA התואמים ל-50, 100, 250, 500 ו-1,000 ננוגרם (ng) של חלבון כולל לכל נתיב.
- שרטטו את השטח המשולב של הפסגה המתוקנת לרקע מול מסת BSA הכוללת, ובצעו רגרסיה ליניארית באמצעות תוכנת גיליונות נתונים או תוכנה לגרפיקה.
- וודאו כי עקומת הסטנדרט מראה לינאריות חזקה (R2 > 0.98) ללא רוויה ניכרת או הגעה למישור (plateauing) של הפסים בעוצמה הגבוהה ביותר.
- אם עקומת הסטנדרט אינה ליניארית או אם חלק מהפסים שנמדדו רווים, יש לרכוש מחדש את תמונת הג'ל באמצעות זמן חשיפה קצר יותר, או לחזור על הג'ל עם עומס דגימה נמוך יותר.
- השתמש בעקומת הכיול כדי לקבוע את יחס הציפוי של מיוזין ל-NPF.
- קבע את כמות החלבון הכוללת בדגימות החרוזים ובתקני החלבון המטוהר באמצעות אינטרפולציה בתוך טווח הגילוי הליניארי.
- חשבו את יחס הציפוי המתאים של מיוזין ל-NPF עבור כל סוג חרוז.
- בעת קביעת תנאי ציפוי חדשים או שינוי הפרוטוקול, יש לבצע מדימות באמצעות דגימות חוזרות של הכנת החרוזים או ג'לים חוזרים.
- עבור ניסויים שגרתיים, השוו את יחס הציפוי שנמדד להכנות שעברו תיקוף בעבר.
- חזור על הציפוי או על הכימות אם היחס הנמדד חורג מהטווח הצפוי או אם מדידות חוזרות אינן עקביות.
- העברה 20 µL של תרחוף חרוזי מכל סוג חרוז (חרוזי בקרה וחרוזי מיוזין) אל מבחנות מיקרו-צנטריפוגה נפרדות. השקיעו את החרוזים באמצעות צנטריפוגה במהירות של 16,000 × g למשך 2 דקות ב- 4°C והסר בזהירות את הנוזל העליון (supernatant). שטוף את החרו지를 עם 25 µL של באפר M. שקע את החרוזים באמצעות סריפוגציה במהירות של 16,000 × g למשך 2 דקות ב- 4°Cהסיר בזהירות את הנוזל העליון (supernatant), וחזור על השטיפה פעם אחת כדי להסיר BSA מתוך תמיסת האחסון.
3. בדיקת ניידות חרוזי זנב-שביט של אקטין
- בדיקה סטנדרטית של ניידות חרוזיים
- הכינו אקטין מאבקת אצטון של שריר שלד של ארנב לפי פרוטוקול הטיהור שפורסם41. טהרו אקטין גלובולרי מונומרי (G-actin) באמצעות כרומטוגרפיית הפרדה לפי גודל (size-exclusion chromatography) תוך שימוש בעמודת Sephacryl S-300 שהושוותה עם G-buffer המכיל 2 mM Tris-HCl (pH 8.0), 0.2 mM ATP, 0.1 mM CaCl₂, 1 mM NaN₃, ו-0.5 mM DTT. שמרו את ה-G-actin המטוהר על קרח ב-4°C והשתמשו בו תוך 2–3 שבועות.
- טהרו את קומפלקס Arp2/3 ממוח של בקר לפי הפרוטוקול שפורסם42. חלקו את החלבון המטוהר לאליקוויטות לשימוש חד-פעמי, הקפיאו את האליקוויטות בהקפאה מהירה (flash-freeze), ושמרו ב-−80°C.
- בצעו ביטוי וטיהור של CapZ אנושי לפי הפרוטוקול שפורסם43. חלקו את החלבון המטוהר לאליקוויטות לשימוש חד-פעמי, הקפיאו את האליקוויטות בהקפאה מהירה, ושמרו ב-−80°C.
- טהרו קלמודולין לפי הפרוטוקול שפורסם44. חלקו את החלבון המטוהר לאליקוויטות ושמרו אותן ב-−20°C.
הערה: העריכו את האיכות של קומפלקס Arp2/3 המטוהר, CP (CapZ) וקלמודולין לפני השימוש. העריכו את טהרת החלבון באמצעות SDS-PAGE שצבע ב-Coomassie. תכשירים קבילים צריכים להראות את פסי החלבון העיקריים הצפויים עם מינימום של פירוק או פסי זיהום. קבעו את ריכוז החלבון על ידי מדידת הבליעה ב-280 nm או באמצעות בדיקת חלבון קולורימטרית סטנדרטית (למשל, בדיקת בראדפורד) עם אליקוויטות שהופשרו זה עתה. אין להשתמש באליקוויטות של חלבון המראות שקיעה נראית לעין, מחזורי הקפאה-הפשרה חוזרים, או פירוק משמעותי ב-SDS-PAGE. להערכת פעילות, ניתן לאמת את פעילות קומפלקס Arp2/3 באמצעות יכולתו לקדם הרכבת אקטין תלויה-NPF בבדיקת פולימריזציה של pyrene-actin או על ידי יצירה חזקה של זנבות שביטים (comet-tails) של אקטין מסועף בבדיקת ניידות חרוזיים. ניתן להעריך את פעילות CapZ באמצעות יכולתו לווסת את הצמיחה של סיבי אקטין ואת מורפולוגיית זנב השביט בבדיקת החרוזיים, או באמצעות בדיקת כיסוי קצוות-barbed במידת הצורך. איכות הקלמודולין מוערכת באמצעות SDS-PAGE ועל ידי יכולתו לתמוך בפעילות myosin-I בבדיקות ניידות. בעת שימוש בתכשיר חלבון חדש, השוו את ביצועי הבדיקה עם תכשיר שאושר בעבר לפני שימושו לניסויים כמותיים. - הכינו תערובת ניידות של 50 µL המכילה 4 µM G-actin (כולל 5%–10% G-actin מסומן פלואורסצנטית), 200 nM קומפלקס Arp2/3, 6.5–200 nM CP, 2 µM קלמודולין, ו-3 µL תמיסת חרוזיים (1.5 µL חרוזיים מצופים במיוסין ו-1.5 µL חרוזי בקרה) בבופר סופי המכיל 20 mM HEPES (pH 7.5), 100 mM KCl, 1 mM MgCl₂, 1 mM EGTA, 1 mM MgATP, 40 mM DTT, 10 mg/mL BSA, ו-0.2% מתילצלולוז.
- הוסיפו 25 µL של בופר ניידות 2×.
- הוסיפו 6 µL של מים מזוקקים פעמיים.
- הוסיפו 2 µL של 1 M DTT.
- הוסיפו 1 µL של 50 mM ATP.
- הוסיפו 1 µL של 50 mM MgCl₂.
- הוסיפו 5 µL של 100 mg/mL BSA.
- הוסיפו 1 µL של 100 µM קלמודולין.
- הוסיפו 1 µL של 10 µM קומפלקס Arp2/3.
- הוסיפו 1 µL של 325 nM–10 µM CP.
- הוסיפו 3 µL של תמיסת חרוזיים המכילה 1.5 µL חרוזיים מצופים במיוסין ו-1.5 µL חרוזי בקרה.
הערה: ערבבו את תערובת הניידות בעדינות על ידי פיפטינג איטי למעלה ולמטה 3–5 פעמים. הימנעו מוורטקס, פיפטינג מהיר או הכנסת בועות, שכן אלו עלולים להפריע לקומפלקסי חלבונים ולהשפיע על פולימריזציה של אקטין. - התניעו את התגובה על ידי הוספה של 4 µL של 50 µM G-actin המכיל 5%–10% G-actin מסומן פלואורסצנטית. ערבבו מיד וקבעו נקודת זמן זו כ- t = 0.
הערה: לאחר הוספת ה-G-actin והערבוב, טענו את תא התגובה והתחילו ברכישת תמונות מהר ככל האפשר. למדידות קינטיות הניתנות לשחזור, התחילו בצילום תוך 1–2 דקות לאחר t = 0 ולא מאוחר מ-3 דקות לאחר התנעת התגובה. רשמו את העיכוב בפועל בין הוספת ה-G-actin לתחילת הצילום והתחשבו בעיכוב זה בעת שרטוט צמיחת זנב השביט התלויה בזמן.
- הכנת התא
- נקו שקופיות זכוכית וכיסויי זכוכית (coverslips) ב-70% אתנול ולאחר מכן במים דה-יוניים. נקו את משטחי הזכוכית באמצעות פלזמה של אוויר סביבתי למשך 10 דקות.
- מיד לאחר הכנת תערובת הניידות, מרחו 2.3 µL מתערובת התגובה על שקופית זכוכית. הניחו כיסוי זכוכית של 22 mm × 22 mm מעל הדגימה כדי ליצור תא לחיצה (squeeze chamber) עם גובה תא מקורב של 4.3 µm. אטמו את התא עם גריז ואקום והתחילו בצילום מיד.
הערה: גובה התא נשלט על ידי שימוש בנפח דגימה קבוע ובכיסוי זכוכית של 22 mm × 22 mm, אשר יוצרים תא דק שניתן לשחזור כאשר הדגימה מתפשטת באופן אחיד על פני שטח הכיסוי. ניתן להעריך את גובה התא המקורב מחלוקת נפח הדגימה בשטח הכיסוי, וניתן לאמת זאת באופן אמפירי על ידי מדידת מרחק ה-z בין משטחי השקופית והכיסוי באמצעות חרוזי פלואורסצנטיים או סמנים פלואורסצנטיים קשורי-פנים. השתמשו באותו נפח דגימה, גודל כיסוי ופרוצדורת הרכבת תא בכל הניסויים כדי לשמור על גיאומטריית תא עקבית. לפני הצילום, בחנו את התא ויזואלית ותחת המיקרוסקופ. הדגימה צריכה למלא את אזור הצילום המרכזי באופן אחיד ללא בועות אוויר גדולות, התפשטות חלקית או דליפה ברורה. אל תצלמו אזורים סמוכים לבועות אוויר, קצוות גריז ואקום, או אזורים שבהם הכיסוי נראה לא מיושב באופן אחיד. הכינו תא חדש אם הדגימה אינה מתפשטת באופן אחיד, מכילה בועות אוויר גדולות או מראה סחף משמעותי הנגרם מדליפה או איטום לקוי.
זהירות: טיפלו בציוד לניקוי פלזמה בהתאם לנהלי הבטיחות של המעבדה במוסד. נקטו באמצעי זהירות מתאימים בעת טיפול בשקופיות זכוכית ובכיסויי זכוכית כדי למזער את הסיכון לפציעה.
- בדיקת ניידות חרוזיים עם שיבוש של מכת הכוח (power stroke) של המיוסין
- דגרו מראש G-actin השמור ב-G-buffer המכיל 2 mM Tris-Cl (pH 8.0), 0.2 mM ATP, 0.5 mM DTT, 0.1 mM CaCl₂, ו-1 mM NaN₃ עם 200 µM EGTA ו-50 µM MgCl₂ למשך 5 דקות על קרח כדי להמיר G-actin ל-Mg-G-actin לפני השימוש.
- הכינו תערובת ניידות של 50 µL לניסויי סידן על ידי החלפת קלמודולין ב-1.1 mM CaCl₂ כדי לשבש את מכת הכוח של המיוסין.
- הוסיפו 25 µL של בופר ניידות 2×.
- הוסיפו 6 µL של מים מזוקקים פעמיים.
- הוסיפו 2 µL של 1 M DTT.
- הוסיפו 1 µL של 50 mM ATP.
- הוסיפו 1 µL של 50 mM MgCl₂.
- הוסיפו 5 µL של 100 mg/mL BSA.
- הוסיפו 1 µL של 55 mM CaCl₂.
- הוסיפו 1 µL של 10 µM קומפלקס Arp2/3.
- הוסיפו 1 µL של 325 nM–10 µM CP.
- הוסיפו 3 µL של תמיסת חרוזיים המכילה 1.5 µL חרוזיים מצופים במיוסין ו-1.5 µL חרוזי בקרה.
הערה: ערבבו את התגובה בעדינות עד שכל הרכיבים מפוזרים באופן אחיד לפני התנעת פולימריזציית אקטין.
הערה: התגובה הסופית מכילה סך הכל 1.1 mM CaCl2 וכ-1.0 mM EGTA, מה שנותן ריכוז מוערך של Ca2+ חופשי בסדר גודל של 10−4 M. בהתבסס על עודף ה-CaCl2 מעל ה-EGTA, ריכוז ה-Ca2+ החופשי הוא בערך 100 µM. חישובים מדויקים יותר של בופר סידן באמצעות MaxChelator או כלי דומה המתחשב ב-EGTA, Mg2+, ATP, pH וטמפרטורה מעריכים את ריכוז ה-Ca2+ החופשי בערך 80–100 µM. - התניעו את התגובה על ידי הוספה של 4 µL של 50 µM Mg-G-actin המכיל 5–10% G-actin מסומן פלואורסצנטית. ערבבו מיד וקבעו נקודת זמן זו כ- t = 0.
- הכינו את תא הצילום כפי שמתואר בשלב 3.1.6.
- צילום במיקרוסקופ
- רכשו תמונות פלואורסצנטיות ב-25°C באמצעות מיקרוסקופ אפי-פלואורסצנטי המצויד בעדשת שמן 100× (ממספר צמצם 1.4), מקור אור חיצוני של metal-halide, מצלמת CCD ותוכנה לרכישת תמונות.
- צלמו אקטין פלואורסצנטי באמצעות סט פילטרים של rhodamine/TRITC וצלמו חרוזיים המסומנים בצבע פלואורסצנטי באדום-רחוק באמצעות סט פילטרים של Cy5/far-red fluorescence .
- רכשו תמונות במצב 16-bit תוך שימוש ב-binning של המצלמה ב-1 × 1 או 2 × 2. שמרו על הגבר המצלמה (gain), עוצמת התאורה, זמן החשיפה וסט הפילטרים זהים עבור כל הדגימות שיושוו באופן כמותי.
הערה: לפני איסוף נתונים כמותיים, כוון את עוצמת התאורה ואת זמן החשיפה באמצעות שדה ראייה מייצג כך שסיגנל זנב השביט של האקטין יהיה ניתן לגילוי בבירור אך לא רווי. בדקו את ההיסטוגרמה של התמונה כדי לוודא שעוצמת הפיקסל המקסימלית נשארת מתחת לסף הרוויה של המצלמה. השתמשו בעוצמת התאורה הנמוכה ביותר ובזמן החשיפה הקצר ביותר המספקים יחס אות לרעש מספיק. אין להשוות עוצמות פלואורסצנציה בין דגימות שנרכשו עם זמני חשיפה, הגבר מצלמה, binning או הגדרות תאורה שונות.
- התחילו ברכישת תמונות מיד לאחר התנעת התגובה. רכשו רצפי תמונות של time-lapse משדות המכילים הן חרוזיים מצופים במיוסין והן חרוזי בקרה. זהו את חרוזי הבקרה באמצעות ערוץ הפלואורסצנציה באדום-רחוק.
- רכשו תמונות כל 5–15 שניות למשך 20 דקות תוך שימוש בזמן חשיפה של 100–200 ms לכל פריים. השוו את קינטיקת צמיחת זנב השביט של חרוזיים מצופים במיוסין וחרוזי בקרה בתוך אותו שדה ראייה.
הערה: ברוב הניסויים, זנבות השביט מתארכות במהירות קבועה בקירוב במהלך כ-10 הדקות הראשונות לאחר שבירת הסימטריה. ההארכה מאיטה ככל שהריאגנטים מתכלים ובדרך כלל פסיקה כ-30 דקות לאחר התנעת התגובה18. - כדי להעריך את מורפולוגיית זנב השביט באופן בלתי תלוי בדינמיקת הצמיחה המוקדמת, דגרו את תערובת הניידות במבחנה של מיקרו-צנטריפוגה למשך 15–20 דקות בטמפרטורת החדר כדי לאפשר לזנבות השביט להתפתח.
- מרחו 2.3 µL מתערובת התגובה על שקופית זכוכית והרכיבו תא לחיצה כפי שמתואר בשלב 3.1.6. צלמו את כל שטח התא ורכשו תמונות מייצגות המכילות הן חרוזיים מצופים במיוסין והן חרוזי בקרה. זהו את חרוזי הבקרה באמצעות ערוץ הפלואורסצנציה באדום-רחוק והשוו את מורפולוגיית זנב השביט בתוך אותו שדה ראייה.
הערה: להשוואה ישירה, בחרו שדות צילום המכילים הן חרוזיים מצופים במיוסין והן חרוזי בקרה, מאוירים באופן אחיד, ממוקדים, וממוקמים הרחק מקצוות התא, גריז ואקום, בועות אוויר גדולות או אזורים עם מילוי חלקי. שללו חרוזיים שמאוגדים, חופפים לחרוזיים שכנים, נמצאים חלקית מחוץ לשדה הראייה, או שלא ניתן לבצע להם סגמנטציה מהימנה בגלל ארטיפקטים של צילום או מיקוד רע. השתמשו באותן הגדרות רכישה לכל השדות בתוך ניסוי. לפני הדגימה, ערבבו בעדינות את תערובת התגובה עם טיפ פלסטי נקי 5–7 פעמים כדי לשמור על פיזור חרוזיים אחיד. אין לערבב באמצעות פיפטינג מכיוון ששאיבה ופליטה חזקות עלולות להפריע לרשת זנבות השביט של האקטין או להפריד את החרוז מזנב השביט. אם נדרש ייצוב של רשת האקטין, הוסיפו פאלואידין (phalloidin) לפני הדגימה15,18. עבור תגובות המכילות 4 µM אקטין, הוסיפו פאלואידין לריכוז סופי של 4 µM, התואם ליחס מולרי שקול בקירוב לאקטין. דגרו את התגובה על קרח למשך 3–5 דקות, מוגנת מאור, לפני הדגימה.
- רכשו תמונות פלואורסצנטיות ב-25°C באמצעות מיקרוסקופ אפי-פלואורסצנטי המצויד בעדשת שמן 100× (ממספר צמצם 1.4), מקור אור חיצוני של metal-halide, מצלמת CCD ותוכנה לרכישת תמונות.
4. ניתוח כמותי של קינטיקת הצמיחה של זנב השביט של אקטין ושל צפיפות הרשת
הערה: נתחו וכמתו את כל התמונות באמצעות Fiji, פלטפורמה לעיבוד תמונות בקוד פתוח המבוססת על ImageJ (גרסה 2.16.0/1.54p; https://imagej.net/software/fiji/)45.
- קצב צמיחת זנב השביט של האקטין
- מדדו את אורך זנב השביט של האקטין בכל נקודת זמן באמצעות כלי ה-Segmented Line ב-Fiji. עקבו ידנית אחר זנב השביט מהקצה הדיסטלי של הזנב ועד למרכז החרוג עבור כל תמונה, והמירו את האורך שנמדד למיקרומטרים.
- שרטטו את אורך זנב השביט כפונקציה של הזמן. התאימו את 7–10 נקודות הזמן הראשונות, המתאימות לשלב הצמיחה הלינארי הראשוני, באמצעות רגרסיה לינארית. קבעו את קצב צמיחת זנב השביט מתוך השיפוע של הקו המותאם ודווחו על הערך ב-µm/s או µm/min.
הערה: בחרו את חלון הרגרסיה מהשלב המוקדם שבו אורך זנב השביט עולה באופן לינארי בקירוב עם הזמן. ברוב הניסויים, הדבר תואם ל-7–10 נקודות הזמן הראשונות לאחר שבירת הסימטריה או לאחר תחילת התארכות ברורה של זנב השביט. השתמשו באותו קריטריון בחירה עבור כל החרוגים באותו ניסוי. אם הצמיחה מתחילה בזמנים שונים מעט עבור חרוגים שונים, הגדירו את הנקודה הראשונה של חלון הרגרסיה כנקודת הזמן הראשונה שבה זנב שביט מקוטב נראה בבירור ומתארך. כללו רק נקודות זמן עוקבות המראות התארכות מונוטונית או כמעט מונוטונית של הזנב, והתאימו את הנתונים באמצעות רגרסיה לינארית. חלון הרגרסיה שנבחר צריך להראות לינאריות חזקה, ללא מישור (plateau), עצירה או שינוי פתאומי בהתנהגות הצמיחה. הסירו חרוגים מניתוח קצב הצמיחה אם אינם יוצרים זנב שביט מקוטב ברור, מראים צמיחה תקועה או לא לינארית מאוד במהלך חלון המדידה הראשוני, נפרדים מזנב השביט, יוצאים משדה הראייה, חופפים לחרוגים שכנים או לזנבות שביט סמוכים, או מושפעים ממיקוד לקוי או פלואורסצנציה רוויה.
- צפיפות רשת זנב השביט של האקטין
- הגדירו את ה-ROI של זנב השביט באמצעות ערוץ הפלואורסצנציה של האקטין ב-Fiji. החילו סף עצימות המפריד בין הפלואורסצנציה של זנב השביט לרקע המקומי באמצעות Image > Adjust > Threshold. החילו את אותם קריטריוני סף על כל החרוגים של הביקורת והחרוגים המצופים במיוזין שנרכשו באותו שדה ראייה ובהגדרות הדמיה זהות. בדקו את ה-ROI שעבר סף באופן ידני והסירו חרוגים שבהם לא ניתן להבחין בבירור בגבול זנב השביט מהרקע. מדדו את עצימות הפלואורסצנציה הממוצעת בתוך ה-ROI של זנב השביט והגדירו ערך זה כ-Icomet.
- הזיזו את אותו ROI לאזור סמוך שבו אין פלואורסצנציה של זנב שביט. מדדו את עצימות הרקע הממוצעת והגדירו ערך זה כ-Ibackground.
- חשבו את עצימות זנב השביט המתוקנת (Icorr,comet) באמצעות:
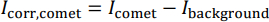
- השתמשו ב-Icorr,comet כמדד לצפיפות רשת האקטין.
הערה: מכיוון שזנב השביט גדל ומשנה את צורתו עם הזמן, ה-ROI של זנב השביט אינו חייב להיות בעל ממדים זהים בכל נקודת זמן. הגדירו את ה-ROI באמצעות אותה שיטת סף לאורך כל ניסוי, כגון שיטת אוטו-סף (auto-threshold) של Triangle או Yen או טווח סף שנבחר ידנית. עבור חיסור רקע, הזיזו העתק זהה של ה-ROI של זנב השביט לאזור סמוך שבו אין פלואורסצנציה של זנב שביט, תוך הימנעות מחרוגים שכנים, רשתות אקטין, בועות אוויר או תאורה לא אחידה. החילו את אותה שיטת סף, הליך בחירת ROI וקריטריוני בחירת רקע באופן עקבי לכל הדגימות שנרכשו בתנאי הדמיה זהים.
- קצב הרכבה פלואורסצנטי של שביט אקטין
- מדדו את עצימות הפלואורסצנציה המשולבת הכוללת של ה-ROI של זנב השביט בכל נקודת זמן באמצעות אותו הליך בחירת ROI שתיאור בשלב 4.2. בצעו חיסור רקע באמצעות אזור סמוך שבו אין פלואורסצנציה של זנב שביט.
- שרטטו את עצימות הפלואורסצנציה המשולבת הכוללת המתוקנת כפונקציה של הזמן. התאימו את 7–10 נקודות הזמן הראשונות באמצעות רגרסיה לינארית והשתמשו בשיפוע הראשוני כקצב ההרכבה הפלואורסצנטי של האקטין.
הערה: תחת תנאי ההדמיה שתיארו לעיל, בדרך כלל לא נצפה פוטובליצ'ינג (photobleaching) ניכר במהלך רכישת ה-time-lapse, ולא מוחל תיקון פוטובליצ'ינג באופן שגרתי. עם זאת, אם נצפה פוטובליצ'ינג משמעותי, העריכו את קצב הדהייה מתוך אזור ייחוס פלואורסצנטי יציב או מדגימה ביקורת שנרכשו תחת אותם תנאי הדמיה. נרמלו את עצימות הפלואורסצנציה של זנב השביט באמצעות עקומת הדהייה של הייחוס לפני התאמת קצב ההרכבה הפלואורסצנטי הראשוני של האקטין.
- יעילות צמיחת שביט אקטין
- חשבו את יעילות צמיחת שביט האקטין על ידי חילוק קצב צמיחת זנב השביט בקצב ההרכבה הפלואורסצנטי של האקטין:
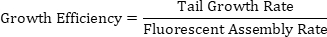
- השתמשו בפרמטר זה כדי להעריך את המרחק שעבר החרוג ליחידת הרכבת אקטין, כמדד לאופן שבו הרכבת האקטין מומרת ביעילות להתקדמות החרוג.
הערה: חשבו את יעילות הצמיחה עבור כל חרוג בנפרד לפני הממוצע בין החרוגים. עבור כל חרוג, קבעו את קצב צמיחת הזנב ואת קצב ההרכבה הפלואורסצנטית מאותו חלון צמיחה לינארי ראשוני, ולאחר מכן חשבו את יעילות הצמיחה עבור אותו חרוג. חשבו ממוצע של ערכי החרוגים האינדיבידואליים בתוך כל תנאי ניסויי, כגון חרוגי ביקורת וחרוגים מצופים במיוזין. להשוואות זיווגיות, השוו בין חרוגי ביקורת לחרוגים מצופים במיוזין שנרכשו באותו שדה ראייה, כיוון שהם חווים תנאי תגובה והדמיה זהים, ובכך מזעזעים את השונות בין שדה לשדה. לניתוח כמותי, נתחו לפחות 10–20 חרוגים לכל תנאי מכל ניסוי עצמאי כאשר יש מספיק חרוגים ניתחים. חזרו על הבדיקה באמצעות לפחות שלוש הכנות חרוגים עצמאיות או ימי ניסוי בעת קביעה או השוואה של תנאי הבדיקה. בצעו את מדידות התמונה באמצעות הגדרות ניתוח תמונה, קריטריוני סף, הליכי בחירת ROI ושיטות חיסור רקע זהים לאורך כל ניסוי. הניתוחים שתיארו בשלבים 4.1–4.4 בוצעו ידנית באמצעות כלי ניתוח התמונה הסטנדרטיים ללא מאקרוים מותאמים אישית.
- חשבו את יעילות צמיחת שביט האקטין על ידי חילוק קצב צמיחת זנב השביט בקצב ההרכבה הפלואורסצנטי של האקטין:
תוצאות
בדיקת ניידות חרוזי זנב-שביט של אקטין שימשה לחקירת השפעת הפעילות של myosin-I על הרכבת אקטין מעובה המתווכת על ידי קומפלקס Arp2/3 בקצה המקדימה של התא, תוך שחזור תרחישים שבהם myosin-I הקשור לממברנה מתאם עם פולימריזציית אקטין כדי להניע בליטת ממברנה7,8,9,10,11,12,13. כדי לחקות את הלוקליזציה המשותפת של myosin-I ו-NPFs בממשק ממברנה–אקטין, שני החלבונים הוכסו יחד על פני השטח של חרוזי מיקרו, ובכך שוחזרה הקירבה המרחבית שלהם במערכת in vitro מבוקרת (איור 1A,B).
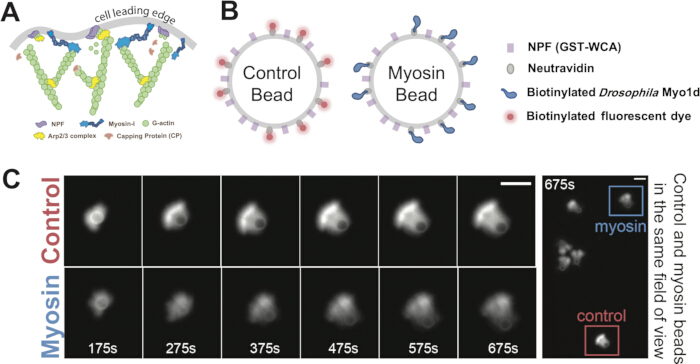
איור 1. שחזור של הרכבת אקטין מסועפת המתווכת על ידי myosin-I על חרוזי מיקרו. (A) סכימה המראה אינטראקציות בין myosin-I, גורמים מקדמי גרעין (NPFs), קומפלקס חלבון אקטין קשור 2/3 (Arp2/3), חלבון כיסוי (CP), ואקטין גלובולרי (G-actin) בקצה המוביל של התא. (B) סכימה של פונקציונליזציה של חרוזים. חרוזי בקרה וחרוזים מצופים במיוזין צופו ב-NPF וב-neutravidin. ה-neutravidin היה מצומד למסמני פלואורסצנציה בצבע אדום רחוק (far-red) עם ביוטין עבור חרוזי הבקרה, או ל- Drosophila Myo1d עם ביוטין עבור חרוזים מצופים במיוזין. (C) סדרת זמן מייצגת המראה צמיחה של זנב שביבית (comet-tail) של אקטין משבירת סימטריה ועד ליצירת זנב שביבית מקוטב עבור חרוז בקרה וחרוז מצופה במיוזין. הפאנל האחרון מראה את שני החרוזים באותו שדה ראייה. סרגל קנה מידה, 5 µm. פאנלים B ו-C הועתקו/שונו מתוך Xu et al., Science Advances, DOI: 10.1126/sciadv.ado5788 (2024), AAAS, באישור. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
כדי להעריך טוב יותר את התרומה הספציפית של myosin-I להרכבת אקטין, הוכנה גם חבֵרת ביקורת תואמת. חבֵרות הביקורת היו זהות לחבֵרות המצופות ב-myosin, למעט העובדה ש-myosin-I הוחלף בצבע פלואורסצנטי אדום-רחוק (far-red) ביוטינילי, המצומד ל-neutravidin (איור 1B). ערבוב שני סוגי החבֵרות בתוך אותה תא תגובה והדמייתם באותו שדה ראייה אפשרו השוואה ישירה של הרכבת אקטין מסועף בנוכחות ובמינור של myosin-I תחת תנאים ניסויים זהים (איור 1C). יתרה מכך, על ידי שינוי היחס בין myosin ל-NPF על פני שטח החבֵרה, ניתן היה לבחון באופן שיטתי את השפעת ה-myosin-I בצפיפויות שטח שונות (איור 2A,B). בנוסף, ניתן היה לכוון את צפיפות רשת האקטין על ידי התאמת ריכוז ה-CP, ובכך לייצר רשתות הנעות בין מבנים דחוסים העמידים לשבירת סימטריה לבין ארכיטקטורות מאורגנות באופן רופף ונוטות לשברים15,19,24. גישה זו אפשרה לחקור כיצד myosin-I משפיע על הרכבת אקטין מסועף ברשתות בעלות צפיפות ושלמות מבנית משתנה (איור 2A,B).
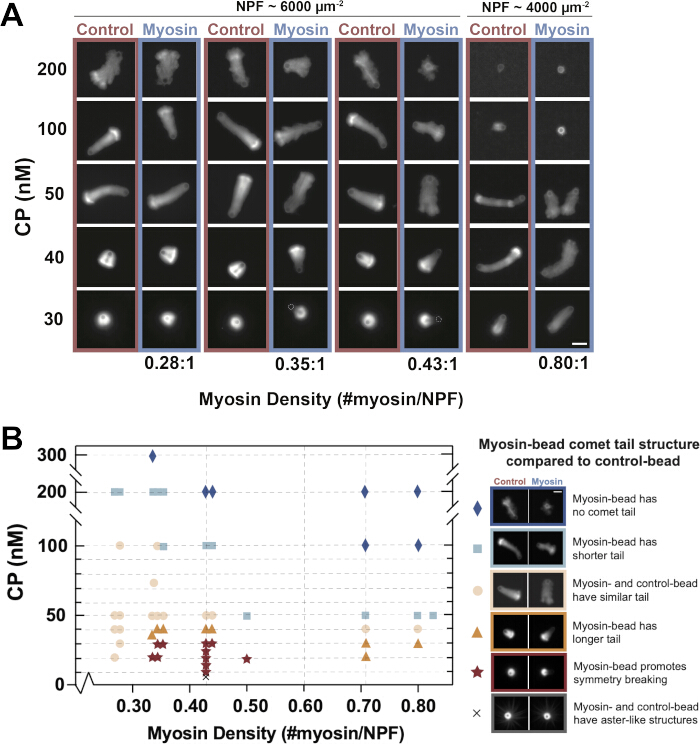
איור 2. מורפולוגיית זנב-שביט של אקטין בצפיפויות שטח שונות של מיוזין ובריכוזים שונים של חלבון סגירה (capping protein). (A) תמונות פלואורסצנציה מייצגות של חרוזיים בקוטר 2-µm מצופים בצפיפויות שטח שונות של מיוזין והורכבו בתגובות המכילות 30–200 nM של חלבון סגירה (CP), 4 µM אקטין עם 5% אקטין מסומן ברודמין, ו-200 nM של קומפלקס Arp2/3 . עבור כל תנאי, חרוזי בקרה וחרוזים מצופים במיוזין צולמו באותו שדה ראייה. צפיפויות השטח של מיוזין ושל גורם מקדם גרעין (NPF) נקבעו באמצעות אלקטרופורזה של ג'ל פוליאקרילאמיד עם סודיום דודציל סולפט, כפי שמתואר בשלב 2.3. התמונות נרכשו 20–35 דקות לאחר תחילת התגובה. הבהירות והניגודיות הותאמו באופן ליניארי וזהה בתוך כל זוג חרוזי בקרה-מיוזין, אך הותאמו באופן עצמאי בין תנאים לצורך ויזואליזציה טובה יותר. סרגל קנה מידה, 5 µm. (B) מפת בדיקה איכותית המסכמת את תוצאות זנב-השביט בריכוזי CP ובצפיפויות שטח של מיוזין שונות. כל נקודת נתון מייצגת זוג תואם של חרוזי בקרה-מיוזין תחת התנאי המצוין. הסמלים מציינים תוצאות שנצפו, כולל חרוזים מצופים במיוזין המעודדים שבירת סימטריה, זנבות ארוכים יותר, זנבות דומות, זנבות קצרים יותר, היעדר היווצרות זנב-שביט, או מבנים דמויי אסטר. הנתונים נאספו מיותר מ-20 ניסויים בלתי תלויים, כאשר יותר מ-10 זוגות חרוזים נותחו עבור כל תנאי. איור זה שושל/עודכן מתוך Xu et al., Science Advances, DOI: 10.1126/sciadv.ado5788 (2024), AAAS, ברשותם. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
עם ערבוב רכיבי הבדיקה, NPFs הקשוריים לפני השטח עודדו הרכבה של אקטין מסועף בתיווך קומפלקס Arp2/3 סביב פני החרוג. בתגובה מוצלחת טיפוסית, האקטין הופיע תחילה כמעטפת דלילה המקיפה את החרוג. עם התקדמות הפולימריזציה, המעטפת התרחבה והרשת הפכה לסבכה וצפופה יותר. הרכבה מתמשכת של אקטין על פני החרוג הניעה צמיחה חיצונית של הרשת, דבר שעלול להוביל לשבירת סימטריה ולהיווצרות של זנב שביט (comet tail) מקוטב. לאחר שזנב השביט התבסס, גרעין אקטין ופולימריזציה מתמשכים על פני החרוג תמכו בתנועה מתמשכת של החרוג (איור 1C). מאפיינים רצופים אלו של היווצרות מעטפת אקטין, שבירת סימטריה, התארכות זנב השביט והנעת החרוג שימשו כאינדיקטורים חזותיים לכך שהבדיקה תפקדה כראוי.
כפי שדווח במחקר המקורי שלנו18 וכפי שמוצג באיור 2A,B, מורפולוגיית זנב השביט הייתה רגישה הן לריכוז ה-CP והן לצפיפות המיוזין על פני השטח. בתנאי בדיקה סטנדרטיים (200 nM של קומפלקס Arp2/3, 50 nM של CP, יחס myosin:NPF = 0.43:1), חרוזיים מצופים במיוזין ייצרו בדרך כלל זנבות שביות של אקטין דלילים או מפוזרים יותר מאשר חרוזי ביקורת (איור 2A). בריכוזי CP נמוכים (<30 nM), האקטין התרכב למעטפים דחוסים ועמידים לשבירה. בתנאים אלה, חרוזי ביקורת נותרו לעיתים קרובות עטופים ולא עברו שבירת סימטריה, בעוד שחרוזיים מצופים במיוזין נטו יותר לשבור את הסימטריה ולהשתחרר ממעטפת האקטין שמסביב (איור 2A,B). בריכוזי CP גבוהים (>200 nM), הלכידות של הרשת פחתה, ונוכחות המיוזין גרמה לערעור נוסף של רשת האקטין, קידמה שילוף של אקטין ומנעה היווצרות של זנבות שביות יציבות (איור 2A,B). תוצאות תלויות-תנאים אלו מספקות נקודות ייחוס שימושיות שחוקרים יכולים להשתמש בהן כדי לזהות משטרי בדיקה מתאימים ולפתור בעיות בביצועי הבדיקה.
ניתן להעריך את השפעת myosin-I על מורפולוגיית זנב השביט של actin על ידי מדידת עוצמת הפלואורסצנציה הממוצעת של זנב השביט. אזור זנב השביט הוגדר באמצעות סף עוצמה, כפי שמתואר בשלב 4.2, ולאחר מכן נמדדה עוצמת הפלואורסצנציה הממוצעת בתוך אזור זה (איור 3A). תחת תנאי דימוי תואמים, שבהם חרוזי בקרה וחרוזים מצופים ב-myosin צולמו באותו שדה ראייה, ערך זה שימש כמדד יחסי ולא מכויל לצפיפות רשת ה-actin, כאשר עוצמה ממוצעת נמוכה יותר העידה על רשת דלילה יותר. תחת תנאי בדיקה סטנדרטיים, חרוזים מצופים ב-myosin יצרו בדרך כלל זנבות שביט עם עוצמת פלואורסצנציה ממוצעת נמוכה יותר מאשר חרוזי בקרה, מה שעולה בקנה אחד עם צפיפות רשת נראית מופחתת (איור 3C).
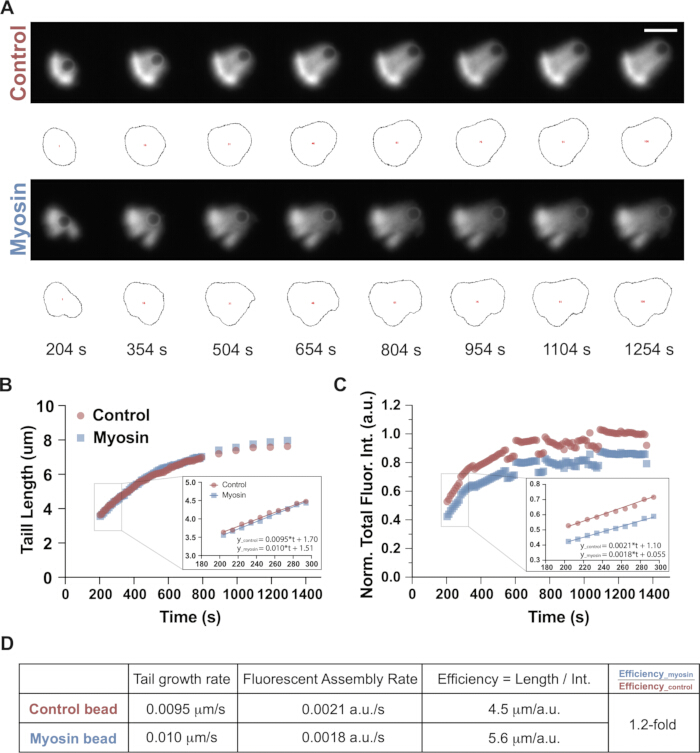
איור 3תהליך עבודה לכימות קינטיקת הצמיחה של זנבות-שביט של אקטין ויעילות ההרכבה. (A) סדרות זמן מייצגות של צמיחת זנב שביב (comet-tail) מחרוג בקרה ומחרוג מצופה במיאוזין ביחס של 0.43:1, בנוכחות 50 nM של חלבון סגירה (CP). קווי מתאר שחורים מציינים את אזורי העניין (ROIs) של זנב השביב, שזוהו באמצעות Fiji למדידות עוצמת פלואורסצנציה. תנאי התגובה: 4 µM אקטין עם 5% אקטין מסומן ברודמין, 200 nM של קומפלקס חלבון 2/3 הקשור לאקטין (Arp2/3), ו-50 nM של CP. סרגל קנה מידה, 5 µm. (B( ) אורך זנב השביט מצויר כפונקציה של הזמן עבור זוג חרוזי ביקורת–מיוזין מייצג המוצג בפאנל (A). המבנית מראה את חלון הזמן ששימש להתאמה ליניארית, ושיעורי צמיחת הזנב נקבעו משיפועי הקווים המותאמים. ( )C) עוצמת פלואורסצנציה כוללת מנורמלת של זנב השביב (comet-tail) מופיעה כפונקציה של זמן עבור זוג חרוזי בקרה-מיוזין מייצג המוצג בפאנל (A). חרוזי הבקרה וחרוזי המיוזין נורמלו לממוצע עוצמת הפלואורסצנציה של חרוזי הבקרה בין השניות 1100 ל-1300. ההמבט (inset) מראה את חלון הזמן ששימש להתאמה ליניארית, וקצבי הרכבת הפלואורסצנציה חושבו מהשיפועים של הקווים שהותאמו. (ד'טבלת סיכום המציגה את קצב צמיחת הזנב, קצב הרכבת הפלואורסצנציה ויעילות הצמיחה עבור זוג חרוזי הבקרה-מיוזין המייצגים המוצגים בלוח (A). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
ניתן לכמת את ההשפעה של myosin-I על קינטיקת הצמיחה של זנב השביט על ידי מדידה הן של התארכות זנב השביט והן של הצטברות פלואורסצנציית אקטין לאורך זמן. ברוב הניסויים, זנבות השביט צמחו במהירות קבועה בקירוב במהלך כ-10 הדקות הראשונות לאחר שבירת הסימטריה. ככל שמרכיבי הפולימריזציה התכלו, ההתארכות האטה בהדרגה ובדרך כלל פסקה כ-30 דקות לאחר תחילת התגובה. כדי לכמת את קינטיקת הצמיחה, אורך זנב השביט ועוצמת הפלואורסצנציה הכוללת שורטטו כפונקציות של זמן (איור 3B,C). 7–10 נקודות הנתונים הראשונות, המתאימות לשלב הליניארי הראשוני, הותאמו באמצעות רגרסיה ליניארית (איור 3B,C, תמונות מוקטנות). השיפועים של התאמות אלו ייצגו את קצב צמיחת הזנב הראשוני ואת קצב הרכבת פלואורסצנציית האקטין, בהתאמה. יעילות הצמיחה הוגדרה כקצב צמיחת זנב השביט חלקי קצב הרכבת פלואורסצנציית האקטין, ובכך כמתה את מידת היעילות שבה פולימריזציית אקטין הומרה להעתקה פרודוקטיבית של חרוז (איור 3D). בדוגמה מייצגת המוצגת באיור 3A–D, החרוז המצופה במיוזין הראה קצב צמיחת זנב של 0.60 µm/min (0.010 µm/s), בהשוואה ל-0.57 µm/min (0.0095 µm/s) עבור חרוז הבקרה (איור 3B,D). יעילויות הצמיחה התואמות היו 5.6 ו-4.5 µm/intensity unit, בהתאמה, המייצגות ערך הגבוה פי 1.2 בקירוב עבור החרוז המצופה במיוזין (איור 3D). בתנאים סטנדרטיים, חרוזים מצופים במיוזין הראו בדרך כלל קצבי צמיחה דומים לאלו של חרוזי הבקרה (מיוזין: 0.69 ± 0.10 µm/min; בקרה: 0.66 ± 0.20 µm/min), יחד עם קצב הרכבת פלואורסצנציית אקטין נמוך יותר (כ-0.76 מהבקרה) ויעילות צמיחה גבוהה פי 1.4 בקירוב, כפי שדווח קודם לכן במחקר המקורי שלנו18. ערכים אלו מדווחים כממוצע ± SD מ-11 זוגות חרוזים לכל תנאי שהתקבלו בחמישה ניסויים בלתי תלויים. ניתוח סטטיסטי בוצע באמצעות מבחן t מזווג דו-זנבי, כפי שמתואר במחקר המקורי18.
כדי להעריך את התרומה של מכת הכוח (power stroke) של המיוזין ולשלול את האפשרות שההשפעות שנצפו נבעו מעכבה סטרית עקב תפיסת פני השטח על ידי המיוזין, ניתן לבצע את בדיקת ניידות החרוזיים בתנאים המשבשים את פעילות מכת הכוח של myosin-I. בפרוטוקול זה, פעילות המנוע של myosin-I עוכבה על ידי הוספת 1.1 mM Ca2+ לתערובת התגובה. רמות גבוהות של Ca2+ קידמו את הדיסוציאציה של קלמודולין מזרוע המנוף של myosin-I, דבר שהפחית את קשיחות זרוע המנוף ופגע ביכולתה להפיק כוח46,47,48. תחת תנאים אלה, myosin-I נשאר מקושר באופן דינמי לאקטין אך לא תמך בהחלקה של האקטין (איור 4A,B), ובכך סיפק ביקורת יעילה להערכת השפעות התלויות בפעילות המנוע18.
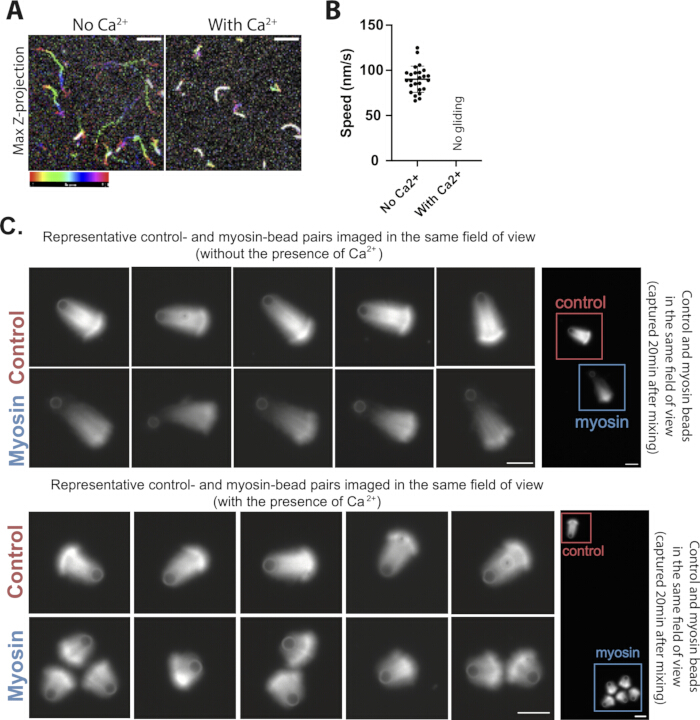
איור 4בקרת סידן להערכת פעילות המנוע Myo1d במבחן ניידות חרוזיים. (Aתמונות במרווחי זמן של סיבי אקטין הנעים על פני שטח מצופה ב-Myo1d בהיעדר רמות סידן גבוהות, או היוצרים דפוסי סיבוב לא פרודוקטיביים בנוכחותם 100 µM סידן חופשי. סרגל הצבעים בעגולת הקשת מעיד על התקדמות הזמן לאורך 61 פריימים שנרכשו במרווחי זמן של 5 שניות. סרגל קנה מידה, 5 µm. (Bכימות מהירות ההחלקה של אקטין בהיבט של היעדרות או נוכחות של 100 µM סידן חופשי (N = 2 ניסויים עצמאיים; n = 25 סיבים). לא נצפתה החלקה פרודוקטיבית של אקטין בנוכחות של 100 µM סידן חופשי בתנאים אלה. פסי השגיאה מייצגים את סטיית התקן (SD). (C) זוגות מייצגים של ביסור ביקורת וביסור מצופה במיוזין שהורכבו בהיעדר או בנוכחות של 100 µM סידן חופשי. חמיה זוגות חרוזים מייצגים מוצגים עבור כל תנאי. בתוך כל זוג, החרוז השליטה והחרוז המצופה במיוזין צולמו באותו שדה ראייה. התמונות נרכשו כ-15–20 דקות לאחר תחילת התגובה. הבהירות והניגודיות הותאמו באופן ליניארי וזהה בתוך כל זוג חרוזי שליטה-מיוזין, אך הותאמו באופן עצמאי בין התנאים השונים. תנאי התגובה: 4 µM אקטין עם 5% אקטין המסומן ברודמין, 200 nM של קומפלקס חלבון 2/3 קשור לאקטין (Arp2/3), ו-50 nM של חלבון סגירה (CP). סרגלי קנה מידה, 5 µmלוחות A ו-B הועתקו/שונו מתוך Xu et al., Science Advances, DOI: 10.1126/sciadv.ado5788 (2024), AAAS, ברשות. אנא לחצו כאן כדי להציג גרסה גדולה יותר של דמות זו.
כאשר הבדיקה בוצעה כראוי, חרוזיים מצופים במיאוזין שנבדקו תחת תנאי Ca2+ גבוהים הניבו זנבות שביטים של אקטין קצרים יותר, עם צפיפויות רשת הדומות לאלו של חרוזי הבקרה (איור 4C). מוצגים חמישה זוגים מייצגים של חרוזי בקרה וחרוזיים מצופים במיאוזין משני ניסויים עצמאיים. תוצאה איכותית זו נצפתה בעקביות לאורך הכנות חוזרות של הבדיקה והיא נתמכת על ידי הניתוח הכמותי שדווח במחקר המקורי18. תוצאה צפויה זו מעידה כי ההבדלים ברשת שנצפו תחת תנאים סטנדרטיים תלויים במכת כוח (power stroke) פעילה של המיאוזין ולא רק בתפוסת פני השטח של המיאוזין. לפיכך, תנאי Ca2+ הגבוה משמש כבקרת מפתח להערכה האם שינויים בארגון רשת האקטין המסתעפת נובעים מפעילות מנועי המיאוזין.
דיון
בדיקת ניידות חרוזי זנב-שביט של אקטין היא מערכת רקונסטרוקציה in vitro מבוססת לחקר הרכבת אקטין מסועפת המתווכת על ידי קומפלקס Arp2/3 ותפקידה ביצירת כוחות דחיפה14,15,16,17. מערכת זו יושמה באופן נרחב כדי לנתח את הרגולציה הביוכימית של הרכבת אקטין מסועפת14,15,26,27,31,49,50,51 ויצירת כוח20,21,22,23,52, תוך שהיא מספקת מסגרת למחקרים כמותיים של תכונות חומר פעיל (active matter) הנובעות מרשתות אקטין19,35,36,53. על ידי שילוב מיוזין, ובמיוחד myosin-I18, במערכת רקונסטרוקציה זו, הבדיקה המודפית מאפשרת לחקור כיצד צימוד בין מיוזין לאקטין מודולטר את הרכבת האקטין ויצירת הכוח בממשק הממברנה, תחום שנותר בלתי נחקר יחסית. ראוי לציין כי ניתן להחליף בקלות את myosin-I במערכת זו במנועי מיוזין אחרים כדי לבחון את תפקידיהם בהסדרה מחדש של רשת האקטין וביצירת כוח. לדוגמה, ניתן לשלב myosin V (הסעת מטען)54, myosin VI (תעבורה אנדוציטית ודינמיקת ממברנה)55,56, myosin VII ו-XV (ארגון סטריוציליות ומיקרווילאיי)57,58,59, myosin X (היווצרות פילופודיה)60,61, ו-myosin XIX (דינמיקה מיטוכונדריאלית)62 כדי לחקור כיצד סוגים שונים של מיוזין תורמים לארגון האקטין ולתהליכים הפיזיולוגיים הנלווים אליהם.
הבדיקה ניתנת לשחזור גבוה בתנאי שמספר פרמטרים קריטיים נשלטים בקפידה. ראשית, G-actin מונומרי באיכות גבוהה חיוני ליצירת זנב-שביט (comet-tail) חסון. אנו ממליצים לנקות G-actin מאבקת אצטון של שריר שלד של ארנב תוך שימוש בפרוטוקולים מבוססים41. לאחר 2–3 ימים של דיאליזה, יש לנקות את האקטין המונומריה further באמצעות סינון ג'ל על Sephacryl S-300 ב-G-buffer (2 mM Tris-HCl, pH 8.0; 0.2 mM ATP; 0.1 mM CaCl2; 1 mM NaN3; ו-0.5 mM DTT). יש להשתמש בפרקציות שנאספו מיד לאחר שיא האלוציה. G-actin מנוקה שומר בדרך כלל על פעילות פולימריזציה חזקה למשך 2–3 שבועות כאשר הוא מאוחסן על קרח ב-4°C, ועשוי להישאר שמיש עד השבוע הרביעי, אם כי הביצועים בדרך כלל יורדים לאחר מכן. חסון מופחת של זנב-השביט, המאופיין ברשתות אקטין דלילות ושבירות ובצמיחה לא עקבית של הזנב, מעיד לעיתים קרובות על איכות אקטין פגועה. שנית, פעילות NPF קובעת באופן קריטי את היווצרות זנב-השביט. דומיין WCA מסומן ב-GST ממקור מסחרי מprotein של תסמונת Wiskott–Aldrich נוירונלי אנושי (N-WASP) (GST-VCA) מספק פעילות גרעין (nucleation) חסונה ומתמשכת, ודימרזציה של GST משפרת עוד יותר פעילות זו63. אנו ממליצים לתקף כל מבנה (construct) של NPF באמצעות בדיקת פולימריזציה של pyrene-actin לפני ציפוי החרוזים. הפעילות של GST-VCA המסחרי יכולה לשמש כסטנדרט ייחוס. ראוי לציין כי ה-GST-VCA המסחרי שנעשה בו שימוש כאן חסר אזור פוליפרולין ולכן אינו מקיים אינטראקציה עם קומפלקסים של profilin–actin26. שלישית, ויזואליזציה אמינה של צמיחת זנב-השביט דורשת הכנה קפדנית של השקפים והכיסויים. אנו ממליצים לנקות ביסודיות שקפים וכיסויים עם מים ואתנול, ולאחריהם ניקוי בפלזמה מיד לפני השימוש. כאשר הם זמינים, כיסויים מסוג polyethylene glycol–silanized26 מועדפים מכיוון שהם ממזערים ספיחה לא ספציפית של חלבונים ומשפרים את השחזוריות. הוספה של ריכוז הולם של BSA לתערובת הניידות יכולה להפחית עוד יותר אינטראקציות לא ספציפיות עם פני השטח ולקדם ביצועי בדיקה עקביים. רביעית, נפח הדגימה המוחל על התא קריטי למדידות אמינות15,16,17. נפח דגימה מופרז גורם לסחיפה של חרוזים, מה שמונע מעקב מדויק אחר התארכות זנב-השביט. לעומת זאת, נפח דגימה לא מספיק דוחס את החרוזים בין השקף לכיסוי, מה שמגביר את החיכוך ומקבע את החרוזים. אילוץ מכני זה עלול לעוות את מורפולוגיית זנב-השביט ולשנות את קינטיקת הצמיחה הנמדדת. לכן, אופטימיזציה של גובה התא ונפח הדגימה חיונית לתוצאות שחזירות. אנו ממליצים לבצע אופטימיזציה אמפירית של נפח הדגימה עבור כל מערך ניסויי. בעת שימוש בכיסוי בגודל 22 mm × 22 mm כפי שמתואר כאן, הפעלת 2.1–2.3 µL של תערובת הניידות יוצרת גובה תא של כ-4.3 µm, מה שמאפשר מיקום יציב של חרוזים בקוטר 2.0-µm ללא סחיפה או דחיסה מופרזת. כאשר נעשה שימוש בכיסוי בגודל שונה, יש להתאים את נפח הדגימה בהתאם כדי להשיג מילוי אחיד של התא, מיקום יציב של החרוזים וסחיפה מינימלית של הדגימה.
אם זנבות השביטים אינם נוצרים, יש לוודא את היכולת לפולימריזציית אקטין ואת הפעילות של NPF. אם לא חלה שבירת סימטריה, יש להתאים את ריכוז ה-CP כדי לווסת את צפיפות הרשת. רשתות צפופות מדי עומדות בפני שברים, בעוד שרשתות דלילות מדי חסרות שלמות מבנית. אם חרוזיים מצופים במיאוזין אינם מראים הבדל לעומת חרוזי ביקורת, יש לאשר את צפיפות המיאוזין על פני השטח ואת פעילות המנוע. לצורך בקרת איכות, קריטריון הקבלה הוא פונקציונלי ולא מבוסס על סף מספרי מוחלט. הכנה חדשה תיחשב לקבילה אם, הוא משחזר את היווצרות וצמיחת זנב השביט שנצפו בהכנה שאושרה בעבר (כפי שמוצג ב- איור 3). בנוסף, יש להעריך כל הכנה חדשה של מיוזין, קומפלקס Arp2/3, NPF, CapZ או אקטין באמצעות בדיקות בקרת איכות מתאימות ולהשוותה להכנה שאושרה בעבר לפני השימוש, וזאת כדי להבטיח עקביות בין ניסויים כמותיים (ראה סעיף 3.1 של הפרוטוקול).
יש לשקול מספר מגבלות של בדיקה זו בעת פירוש התוצאות. ראשית, עוצמת הפלואורסצנציה משמשת כמדד יחסי ולא מכויל לצפיפות רשת האקטין; לפיכך, השוואות צריכות להתבצע רק בין דגימות שצולמו תחת הגדרות רכישה זהות ונותחו באמצעות אותו תהליך סף (thresholding). שנית, ניידות חרוזיים, צמיחת "זנב השביט" (comet-tail) ויעילות הצמיחה מספקות קריאות עקיפות של התנהגות רשת מייצרת כוח, אך אינן מהוות מדידות ישירות של כוח. מדידות מכניות ישירות, כגון מלכודת אופטית או בדיקות עיוות ממבנה מכוילות-כוח64,65, נחוצות כדי לכמת את הכוחות המופעלים על ידי הרשת. שלישית, בדיקה זו אינה פותרת באופן ישיר את an ultra-structure של רשת האקטין, למשל אוריינטציית סיבים, צפיפות הסתעפויות או ארגון מקומי של מיוזין. ייתכן שיידרשו גישות משלימות כגון מיקרוסקופיה אלקטרונית או דימיון ברזולוציה-על (super-resolution imaging) לצורך אפיון מבני בקנה מידה ננומטרי . לבסוף, שימוש בחרוזים קשיחים בגודל מיקרוני מספק ממשק פשוט וניתן לניהול ניסיוני, אך הוא אינו לוכד את היכולת לעיוות, את ההטרוגניות של העקמומיות, את ניידות הליפידים או את המורכבות המולקולרית של ממבנים תאיים. לפיכך, פיתוח עתידי של ממשקים רלוונטיים יותר מבחינה פיזיולוגית יהיה חשוב לחקר האופן שבו רכיבי השלד התאי מתואמים בקצה המוביל של התא.
באופן כללי, גישת הרכבה מחדש (reconstitution) זו מספקת שליטה מדויקת בהרכב ובריכוז החלבונים, ובכך מאפשרת לנתח מרכיבים בודדים באופן מכניסטי בדרכים שקשה להשיגן במערכות תאיות. היא מספקת פלטפורמה רב-גונית לחקר האופן שבו מנועים מולקולריים מעצבים מחדש רשתות אקטין מסועפות וקובעים את ייצור הכוח בממשקים דמויי ממבנה. עם תיקוף מתאים, ניתן להרחיב את הבדיקה כדי לבחון כיצד מחלקות שונות של מיוזין, גרסאות מוטנטיות או גרסאות של מנועים הקשורות למחלות, וחלבונים קושרי-אקטין רגישים לכוח, מווסתים משוב מכני בתוך רשתות אקטין דינמיות. באופן רחב יותר, מערכת זו מסייעת לקשר בין פעילות מנועים בקנה מידה מולקולרי לבין ארגון השלד התאי ותפקוד מכני בקנה מידה מזוסקופי, עם השלכות על ניידות תאים, אנדוציטוזה ועיצוב מחדש של הממבנה.
גילויים
המחברים מצהירים כי אין להם ניגודי עניינים פיננסיים או קונפליקטים של אינטרסים.
תודות
אנו מודים לד"ר Daniel Safer ול-Rick Wike על סיוע טכני מעולה בטיהור חלבונים. אנו מודים לד"ר Roberto Dominguez, ובמיוחד לד"ר Malgorzata Boczkowska ולד"ר Grzegorz Rebowski, על אספקתם הנדיבה של קומפלקס Arp2/3 וחלבונים CapZ. אנו מודים גם לד"ר Luther Pollard, לד"ר Faviolla A. Báez-Cruz, ולכל חברי המעבדות של Ostap ו-Dominguez על תרומתם בעלת הערך לאורך הפרויקט. עבודה זו נתמכה על ידי מענק R37 GM057247 של המכוניים הלאומיים לבריאות (NIH) (עבור E.M.O.). E.M.O. ו-M.X. זכו לתמיכה חלקית מהקרן הלאומית למדע (CMMI-1548571). ChatGPT שימש לסיוע בעריכת השפה במהלך סקירת כתב היד. המחברים סקרו ועריכו את כל התכנים שנוצרו בסיוע בינה מלאכותית והם נושאים באחריות מלאה לכתב היד הסופי.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אדנוזין 5′מלח נתרן דו-פוספט טריפוספט הידרט | סיגמא | A26209 | משמש להכנת בופרים המכילים ATP; יש לחלק למנובות (aliquots) ולאחסן ב- −20°C. |
| קומפלקס Arp2/3 | הוכן במעבדה | מכיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית שברצונך לתרגם לעברית עבור JoVE. | משמש להגרמה של רשתות אקטין מסועפות; טוהרה בהתאם למקור 42. |
| צבע פלואורסצנטי Biotin-CF640 | Biotium | 80032 | משמש לסומן פלואורסצנטי של חרוזי בקרה; יש להגן מאור ולאחסן ב- −80°C. |
| Myo1d ביוטיניליד | הוכן במעבדה | לא רלוונטי | חלבון מוטור המשמש לקישוט חרוזיים מצופים במיאוזין; הוכן כפי שמתואר במקורות 18 ו-38–40. |
| אלבומין משרת בקר | סיגמא | A7906 | משמש עבור תמיסות חסימה של חרו지를 ותמיסות אחסון של חרו지를; הכין תמיסת מלאי מסוננת. |
| סידן כלורי | סיגמא | C7902 | רכיב בופר המשמש בבופר X ובניסויי שיבוש סידן. |
| קלמודולין | הוכן במעבדה | לא רלוונטי | נוסף לתגובות המכילות מיוזין (myosin) ולבuffer אחסון חרוזיים; טוהה בהתאם לסימוכין 44. |
| חרוזי פוליסטירן קרבוקסילאטיים (2.0 µm קוטר) | Polysciences | 18327-10 | משמש כתמיכה מוצקה עבור NPF, NeutrAvidin, צבע פלואורסצנטי וציפוי מיוזין; יש להניח ב- 4°C. |
| מצלמת CCD | Teledyne | 01-RET-R6-R-M-14-C-OC | משמש לרכישת תמונות פלואורסצנציה במהלך מיקרוסקופיה של צילומי Time-lapse. |
| צביעת Coomassie Brilliant Blue | סיגמא | B7920 | משמש לצביעת ג'לים של SDS-PAGE לפני ניתוח דנסیتומטרי. |
| זכוכית כיסוי, 22 מ"מ × 22 מ"מ, #1.5 | גלובוס | 1404-15 | משמש עם זכוכית נשואת מיקרוסקופ להרכבת תאי דחיסה. |
| דיתיותרייטול (DTT) | GoldBio | DTT10 | חומר מחזר המשמש בתמיסות בופר ובתערובות ניידות; יש לאחסן ב- −20°C. |
| משאבת ואקום סלילית יבשה | Agilent Technologies | IDP3B01 | משמש להפעלת מערכת הניקוי בפלסמה. |
| EGTA | GoldBio | E-217-100 | קלטור סידן המשמש בבופר M, בבופר ניידות ובטיפול מקדים של אקטין. |
| מקור אור חיצוני | Leica | EL6000 | מקור אור מהלואיד-מתכת עבור מיקרוסקופיה פלואורסצנטית. |
| Fiji (ImageJ) | קוד פתוח | לא רלוונטי | השתמש בתוכנה לניתוח אורך זנב השביט, עוצמת פלואורסצנציה וצפיפות רשת (גרסה 2.16.0/1.54p). |
| מיקרוסקופ פלואורסצנציה | Leica | DMIRB | מיקרוסקופ אפי-פלואורסצנציה הפוך המשמש להדמיה של זנבות שביות של אקטין. |
| חומצה אצטית גלציאלית | Fisher Chemical | BP2401-212 | מרכיב של תמיסת הסרת הצבע (destaining) עבור ג'ל SDS-PAGE; חומר מאכל, יש לטפל בזהירות ובבטיחות. |
| GST-VCA | שלד התא | VCG03-A | גורם מקדם גרעין המשמש להרכבת אקטין המתווכת על ידי Arp2/3; יש לחלק למנות ולאחסן ב- −80°C. |
| HEPES | GoldBio | H-400-1 | סוכן חיצוי (Buffering reagent) המשמש בבופר X, בבופר M ובבופר תנועתיות (motility buffer). |
| CapZ אנושי | הוכן במעבדה | לא רלוונטי | חלבון סגירה (Capping protein) המשמש לוויסות צפיפות רשת האקטין; טוהה בהתאם למקור 43. |
| מגנזיום כלוריד | Spectrum Chemical | M1035 | רכיב בופר המשמש בבופרי תגובה ובטיפול מקדמי של אקטין. |
| תוכנת הדימוג MetaMorph | Molecular Devices | לא רלוונטי | משמש לבקרת המיקרוסקופ ולרכישת תמונות (גרסה 7.10.4.459). |
| מתנול | סיגמא | MX0485-3 | מרכיב של תמיסת הסרת הצבע עבור ג'ל SDS-PAGE; דליק, יש לטפל בהתאם לנהלי הבטיחות המוסדיים. |
| מתילצלולוז | סיגמא | M0387 | נוסף לתמיסת הניידות (motility buffer) כדי להעלות את צמיגות התמיסה (1500 cP). |
| זכוכית למקרוסקופ (סליידים) | Corning | 2947-75X25 | משמש להרכבת תאי לחיצה (squeeze chambers) עבור מיקרוסקופיה. |
| חלבון NeutrAvidin | Thermo Fisher Scientific | 31000 | משמש לקיבוע של חלבונים ביוטיניליים על פני שפשפונים (beads); יש לחלק למכסויות (aliquots) ולאחסן ב- −80°C. |
| סולם חלבונים צבוע מראש PageRuler Plus | Thermo Scientific | 26619 | סמן משקל מולקולרי המשמש לאנליזת SDS-PAGE; יש לשמור בטמפרטורה של −20°C. |
| מנקה פלסמה | Harrick Plasma | PDC-32G | משמש לניקוי בפלסמה של שקופיות מיקרוסקופ וכיסויות לפני הרכבת התא. |
| מסנן מזרקה מפוליאתרסולפון, 0.22 µm | סיגמא | SLGPR33RS | משמש לסינון של תמיסת המלאי של אלבומין משרת בקר (bovine serum albumin) לפני חלוקה לאליקוטים. |
| אשלגן כלוריד | Fisher BioReagents | BP366-1 | מלח המשמש לשמירה על חוזק יוני בבפרי בבפרוטוקול הבדיקה (assay buffers). |
| אקטין משריר שלד של ארנב | הוכן במעבדה | במידה ואין טקסט מקור לספק, אנא הזן את התוכן המיועד לתרגום. | טוהר בהתאם לסימוכין 41 ושימש כ-G-actin עבור בדיקות הרכבת זנב שביט של אקטין. |
| מיקרוצנטריפוגה מקוררת | Eppendorf | EP-5415R | משמש למשקיעה (pelleting) של חרוזיים במהלך שלבי הכנת החרוזים ושטיפתם. |
| מערבל מבחנות סיבובי (רוטטור שולחני) | Cole-Parmer | EW-04397-40 | משמש במהלך דגירות לציפוי חרוצים כדי לשמור על סספנסיות החרוצים. |
| תמיסת ריצה (running buffer) של Tris/Glycine/SDS (10×) | Bio-Rad | 1610732 | דלל עד ל-1× לפני אלקטרופורזה ב-SDS-PAGE. |
| גריס ואקום | High Vac Depot | 408524 | משמש לאיטום תאי לחיצה לפני דימות פלואורסצנציה. |
| 4%–ג'ל פוליאקרילאמיד-SDS במדרג של 20% | Thermo Fisher Scientific | XP04205BOX | משמש לאנליזת SDS-PAGE של חלבונים הקשורים לחרוצים; יש לשמור ב- 4°C. |
מקורות
- Blanchoin L, Boujemaa-Paterski R, Sykes C, Plastino J. Actin dynamics, architecture, and mechanics in cell motility. Physiol Rev. 2014;94(1):235-63.
- Svitkina T. The actin cytoskeleton and actin-based motility. Cold Spring Harb Perspect Biol. 2018;10(1).
- Papalazarou V, Machesky LM. The cell pushes back: The Arp2/3 complex is a key orchestrator of cellular responses to environmental forces. Curr Opin Cell Biol. 2021;68:37-44.
- Krendel M, Gauthier NC. Building the phagocytic cup on an actin scaffold. Curr Opin Cell Biol. 2022;77:102112.
- Yang C, et al. Actin polymerization promotes invagination of flat clathrin-coated lattices in mammalian cells by pushing at lattice edges. Nat Commun. 2022;13(1):6127.
- Clarke DN, Martin AC. Actin-based force generation and cell adhesion in tissue morphogenesis. Curr Biol. 2021;31(10):R667-R80.
- McConnell RE, Tyska MJ. Leveraging the membrane-cytoskeleton interface with myosin-1. Trends Cell Biol. 2010;20(7):418-26.
- Almeida CG, et al. Myosin 1b promotes the formation of post-Golgi carriers by regulating actin assembly and membrane remodelling at the trans-Golgi network. Nat Cell Biol. 2011;13(7):779-89.
- McIntosh BB, Ostap EM. Myosin-I molecular motors at a glance. J Cell Sci. 2016;129(14):2689-95.
- Pedersen RTA, Drubin DG. Type I myosins anchor actin assembly to the plasma membrane during clathrin-mediated endocytosis. J Cell Biol. 2019;218(4):1138-47.
- Barger SR, et al. Membrane-cytoskeletal crosstalk mediated by myosin-I regulates adhesion turnover during phagocytosis. Nat Commun. 2019;10(1):1249.
- Manenschijn HE, et al. Type-I myosins promote actin polymerization to drive membrane bending in endocytosis. eLife. 2019;8.
- Smith SL, et al. Class-I myosin responds to changes in membrane tension during clathrin-mediated endocytosis in human induced pluripotent stem cells. Proc Natl Acad Sci U S A. 2026;123(9):e2532817123.
- Loisel TP, Boujemaa R, Pantaloni D, Carlier MF. Reconstitution of actin-based motility of Listeria and Shigella using pure proteins. Nature. 1999;401(6753):613-6.
- Akin O, Mullins RD. Capping protein increases the rate of actin-based motility by promoting filament nucleation by the Arp2/3 complex. Cell. 2008;133(5):841-51.
- Boujemaa-Paterski R, et al. Directed actin assembly and motility. Methods Enzymol. 2014;540:283-300.
- Sykes C, Plastino J. Reconstitution of actin-based motility with commercially available proteins. J Vis Exp. 2022;(188).
- Xu M, et al. Myosin-I synergizes with Arp2/3 complex to enhance the pushing forces of branched actin networks. Sci Adv. 2024;10(37):eado5788.
- Kawska A, et al. How actin network dynamics control the onset of actin-based motility. Proc Natl Acad Sci U S A. 2012;109(36):14440-5.
- Cameron LA, Footer MJ, van Oudenaarden A, Theriot JA. Motility of ActA protein-coated microspheres driven by actin polymerization. Proc Natl Acad Sci U S A. 1999;96(9):4908-13.
- Bernheim-Groswasser A, et al. The dynamics of actin-based motility depend on surface parameters. Nature. 2002;417(6886):308-11.
- van der Gucht J, Paluch E, Plastino J, Sykes C. Stress release drives symmetry breaking for actin-based movement. Proc Natl Acad Sci U S A. 2005;102(22):7847-52.
- Achard V, et al. A "primer"-based mechanism underlies branched actin filament network formation and motility. Curr Biol. 2010;20(5):423-8.
- Noireaux V, et al. Growing an actin gel on spherical surfaces. Biophys J. 2000;78(3):1643-54.
- Theriot JA, Mitchison TJ, Tilney LG, Portnoy DA. The rate of actin-based motility of intracellular Listeria monocytogenes equals the rate of actin polymerization. Nature. 1992;357(6375):257-60.
- Bieling P, et al. WH2 and proline-rich domains of WASP-family proteins collaborate to accelerate actin filament elongation. EMBO J. 2018;37(1):102-21.
- Funk J, et al. A barbed end interference mechanism reveals how capping protein promotes nucleation in branched actin networks. Nat Commun. 2021;12(1):5329.
- Gautreau AM, Fregoso FE, Simanov G, Dominguez R. Nucleation, stabilization, and disassembly of branched actin networks. Trends Cell Biol. 2022;32(5):421-32.
- Nakamura F, Osborn E, Janmey PA, Stossel TP. Comparison of filamin A-induced cross-linking and Arp2/3 complex-mediated branching on the mechanics of actin filaments. J Biol Chem. 2002;277(11):9148-54.
- Colin A, et al. Friction patterns guide actin network contraction. Proc Natl Acad Sci U S A. 2023;120(39):e2300416120.
- Colin A, et al. Recycling of the actin monomer pool limits the lifetime of network turnover. EMBO J. 2023;42(9):e112717.
- Suarez C, et al. Reconstitution of the transition from a lamellipodia- to filopodia-like actin network with purified proteins. Eur J Cell Biol. 2023;102(4):151367.
- Pollard LW, Boczkowska M, Dominguez R, Ostap EM. Myosin-1C differentially displaces tropomyosin isoforms altering their inhibition of motility. J Biol Chem. 2024;300(8):107539.
- Thompson CP, et al. Non-muscle tropomyosins inhibit myosin-19 and dynamically localize to mitochondrially associated actin filaments. J Biol Chem. 2026;302(5):111377.
- Bussonnier M, et al. Mechanical detection of a long-range actin network emanating from a biomimetic cortex. Biophys J. 2014;107(4):854-62.
- Paluch E, van der Gucht J, Joanny JF, Sykes C. Deformations in actin comets from rocketing beads. Biophys J. 2006;91(8):3113-22.
- Lewis JH, Lin T, Hokanson DE, Ostap EM. Temperature dependence of nucleotide association and kinetic characterization of Myo1b. Biochemistry. 2006;45(38):11589-97.
- Baez-Cruz FA, Ostap EM. Drosophila class-I myosins that can impact left-right asymmetry have distinct ATPase kinetics. J Biol Chem. 2023;299(8):104961.
- Lin T, Tang N, Ostap EM. Biochemical and motile properties of Myo1b splice isoforms. J Biol Chem. 2005;280(50):41562-7.
- Lebreton G, et al. Molecular to organismal chirality is induced by the conserved myosin 1D. Science. 2018;362(6417):949-52.
- Spudich JA, Watt S. The regulation of rabbit skeletal muscle contraction. I. Biochemical studies of the interaction of the tropomyosin-troponin complex with actin and the proteolytic fragments of myosin. J Biol Chem. 1971;246(15):4866-71.
- Boczkowska M, et al. X-ray scattering study of activated Arp2/3 complex with bound actin-WCA. Structure. 2008;16(5):695-704.
- Rao JN, Madasu Y, Dominguez R. Mechanism of actin filament pointed-end capping by tropomodulin. Science. 2014;345(6195):463-7.
- Putkey JA, Slaughter GR, Means AR. Bacterial expression and characterization of proteins derived from the chicken calmodulin cDNA and a calmodulin processed gene. J Biol Chem. 1985;260(8):4704-12.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Greenberg MJ, Ostap EM. Regulation and control of myosin-I by the motor and light chain-binding domains. Trends Cell Biol. 2013;23(2):81-9.
- Lewis JH, et al. Calcium regulation of myosin-I tension sensing. Biophys J. 2012;102(12):2799-807.
- Manceva S, et al. Calcium regulation of calmodulin binding to and dissociation from the Myo1c regulatory domain. Biochemistry. 2007;46(42):11718-26.
- Mullins RD, Bieling P, Fletcher DA. From solution to surface to filament: actin flux into branched networks. Biophys Rev. 2018;10(6):1537-51.
- Mooren OL, et al. Reconstitution of Arp2/3-nucleated actin assembly with proteins CP, V-1, and CARMIL. Curr Biol. 2024;34(22):5173-86.e4.
- Pollard LW, et al. Genetically inspired in vitro reconstitution of Saccharomyces cerevisiae actin cables from seven purified proteins. Mol Biol Cell. 2020;31(5):335-47.
- Marcy Y, Prost J, Carlier MF, Sykes C. Forces generated during actin-based propulsion: a direct measurement by micromanipulation. Proc Natl Acad Sci U S A. 2004;101(16):5992-7.
- Dayel MJ, et al. In silico reconstitution of actin-based symmetry breaking and motility. PLoS Biol. 2009;7(9):e1000201.
- Hammer JA 3rd, Sellers JR. Walking to work: roles for class V myosins as cargo transporters. Nat Rev Mol Cell Biol. 2011;13(1):13-26.
- Buss F, Kendrick-Jones J. How are the cellular functions of myosin VI regulated within the cell. Biochem Biophys Res Commun. 2008;369(1):165-75.
- Spudich JA, Sivaramakrishnan S. Myosin VI: an innovative motor that challenged the swinging lever arm hypothesis. Nat Rev Mol Cell Biol. 2010;11(2):128-37.
- Self T, et al. Shaker-1 mutations reveal roles for myosin VIIA in both development and function of cochlear hair cells. Development. 1998;125(4):557-66.
- Crawley SW, et al. Intestinal brush border assembly driven by protocadherin-based intermicrovillar adhesion. Cell. 2014;157(2):433-46.
- Houdusse A, Titus MA. The many roles of myosins in filopodia, microvilli and stereocilia. Curr Biol. 2021;31(10):R586-R602.
- Bohil AB, Robertson BW, Cheney RE. Myosin-X is a molecular motor that functions in filopodia formation. Proc Natl Acad Sci U S A. 2006;103(33):12411-6.
- Fitz GN, et al. Protrusion growth driven by myosin-generated force. Dev Cell. 2023;58(1):18-33.
- Quintero OA, et al. Human Myo19 is a novel myosin that associates with mitochondria. Curr Biol. 2009;19(23):2008-13.
- Zimmet A, et al. Cryo-EM structure of NPF-bound human Arp2/3 complex and activation mechanism. Sci Adv. 2020;6(23):eaaz7651.
- Giardini PA, Fletcher DA, Theriot JA. Compression forces generated by actin comet tails on lipid vesicles. Proc Natl Acad Sci U S A. 2003;100(11):6493-8.
- Upadhyaya A, Chabot JR, Andreeva A, Samadani A, van Oudenaarden A. Probing polymerization forces by using actin-propelled lipid vesicles. Proc Natl Acad Sci U S A. 2003;100(8):4521-6.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב