היישום של תאי CAR T בגידולים מוצקים מוגבל בשל תהליכי ייצור מורכבים ex vivo וחששות בטיחותיים. פרוטוקול זה מתאר שיטה ליצירה in situ של תאי CAR-T זמניים באמצעות הובלה מתווכת LNP של mRNA המקודד ל-CAR, ובכך מספק פלטפורמה הניתנת לשחזור וניתנת להתאמה ליישומים אחרים של הנדסת תאי חיסון מבוססת mRNA.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
יצירה In Situ של תאי CAR-T ספציפיים ל-Claudin18.2 באמצעות הובלת mRNA באמצעות ננו-חלקיקי ליפידים
* These authors contributed equally
במאמר זה
סיכום
תקציר
טיפול בתאי T עם קולטן אנטיגני כימרי (CAR) השיג הצלחה קלינית ניכרת בממאירות המטולוגיות; עם זאת, יישומו הרחב מוגבל בשל עלויות ייצור גבוהות ויעילות לא מספקת נגד גידולים מוצקים. כדי להתגבר על אתגרים אלו, פותחה אסטרטגיה ליצירת תאי CAR-T באופן in situ המבוססת על הובלה באמצעות ננו-חלקיקים שומניים (LNP) של mRNA של CAR המכוון ל-Claudin18.2, המאפשרת ייצור זמני של תאי CAR-T ישירות בתוך רקמת הגידול. בעקבות טרנספקציית LNP, תאי T מופעלים הראו ביטוי שטח יעיל של CARs. תאי CAR-T זמניים אלו הדגימו פעילות ציטוטוקסית עוצמתית נגד שורות תאי קרצינומה של הקיבה חיוביים ל-Claudin18.2, כולל NUGC4 ו-NCI-N87, והניבו יעילות אנטי-גידולית משמעותית במודלים של עכברים נושאי גידול. פרוטוקול זה מתאר הליכים מפורטים לטרנסקריפציה in vitro של mRNA של CAR, פורמולציית LNP, הפעלת תאי T וטרנספקציה, ניתוח ביטוי CAR, והערכה תפקודית in vitro ו- in vivo של ציטוטוקסיות המתווכת על ידי CAR-T. יחד, אסטרטגיה זו מספקת פלטפורמה יעילה מבחינת עלויות ורב-גונית ליצירת תאי CAR-T זמניים ומציעה גישה מבטיחה לטיפול בגידולים מוצקים.
מבוא
השכיחות ושיעורי התמותה מסרטן עולים במהירות ברחבי העולם. מצב זה מהווה איום על הישרדות בני האדם ועל הפיתוח החברתי. סרטן הקיבה הוא הגורם השלישי המוביל למקרי מוות הקשורים לסרטן בעולם והוא שכיח מאוד1. בשל שיעורים נמוכים של אבחון מוקדם, חלק ניכר מהמטופלים מאובחנים בשלבים מתקדמים. טיפולים מסורתיים כוללים ניתוח, רדיותרפיה וכימותרפיה. כריתה כירורגית עבור מטופלים עם סרטן קיבה בשלבים בינוניים עד מאוחרים או במקרים מורכבים עלולה להיות חלקית. יתרה מכך, הטראומה הכירורגית המשמעותית וההחלמה הממושכת לאחר הניתוח עלולות להשפיע לרעה על איכות חייהם של המטופלים ולהוביל פוטנציאלית לסיבוכים. רדיותרפיה וכימותרפיה פוגעות קשות ברקמות נורמליות וגורמות לתופעות לוואי רבות במהלך הטיפול. לעומת זאת, טיפולים ממוקדים וטיפולים תאיים מציעים דיוק ויעילות. טיפולים אלו הפכו לשיטות טיפול עכשוויות חיוניות ומייצגים את המגמה הרווחת בבחירת אסטרטגיות טיפוליות עתידיות.
הופעתה של תרפיית תאי T בעלי קולטן אנטיגני כימרי (CAR-T) קידמה את התרפיה התאית לעבר פריצת דרך משמעותית. היא הפגינה יעילות רבה בטיפול בממאירות המטולוגיות2,3. תרפיית CAR-T משתמשת בתאי T של המטופל עצמו, אשר עברו שינוי גנטי in vitro על ידי הכנסת קולטן אנטיגני כימרי (CAR) ספציפי. קולטן זה מזהה אנטיגנים ספציפיים על פני השטח של תאי גידול ומפעיל את תאי ה-T לתקוף את תאי הסרטן. בשנים האחרונות התקדמו גם המחקרים על תרפיית CAR-T לסרטן הקיבה. בחירת המטרות הטיפוליות היא קריטית במיוחד, שכן היא קובעת את דיוק המיקוד ואת היעילות של תאי ה-CAR-T. בעקבות HER2, עלה Claudin18.2 כמטרה טיפולית בולטת נוספת בסרטן הקיבה, עם שיעורי ביטוי של 40% עד 87% בקרב חולים. Claudin18.2 קבור בדרך כלל בתוך רירית הקיבה. כאשר גידולים ממאירים משבשים את הצומת המהודקת האחראית על חילוף מולקולרי בין-תאי, Claudin18.2 נחשף על פני השטח של תאי הגידול. עובדה זו הופכת אותו למטרה טיפולית ספציפית עבור גידולים אלו4.
בדרך כלל, תהליך הייצור הסטנדרטי של תאי CAR-T כולל איסוף תאים, בחירה והעשרה של תאי T, הפעלת תאי T, בניית גן ה-CAR, טרנסדוקציית גנים, הרחבה, בקרת איכות, אחסון והובלה, ולאחר מכן עירוי למטופל. תהליך ההכנה המלא של תאי CAR-T הוא מורכב ביותר, דורש תנאים סטריליים ומחייב מפרטים קפדניים של הסביבה והציוד. דבר זה מוביל לעלות גבוהה של טיפול ב-CAR-T, המגבילה את יישומו הקליני. כדי להתמודד עם המורכבויות של ייצור CAR-T באופן ex vivo, הוצעה התפיסה של הכנת CAR-T באופן in vivo. גישה זו כוללת תכנות ישיר של תאי CAR-T בתוך גוף המטופל, ובכך מבטלת את הצורך באיסוף תאים, מודיפיקציה והרחבה באופן ex vivo. אסטרטגיה זו שואפת להפחית עלויות, לשפר את הבטיחות והנגישות, ולאפשר יישומים רחבים יותר לטיפול במחלות5.
המפתח להכנת תאי CAR-T in vivo טמון בבחירת וקטור הולכה אופטימלי. כיום, וקטורים מסווגים כויראליים או לא-ויראליים. בין האפשרויות הויראליות, נעשה שימוש בעיקר בוקטורים לנטי-ויראליים (LV) ובקטורים ויראליים המלווים אדנו (AAV). עם זאת, הסיכונים המשמעותיים וקיבולת המטען המוגבלת הקשורה לוקטורים ויראליים מהווים מכשולים מרכזיים למחקר קליני6. חיסרון עיקרי של וקטורים ויראליים להולכה in vivo הוא הפוטנציאל שלהם לאינטגרציה גנומית, שעלולה להוביל לרעילות גנטית ולמוטציות הבלשתיות. מקרים קודמים תיעדו תגובות חיסוניות קטלניות או סרטן בחלק קטן מהמטופלים לאחר הטיפול. יתרה מכך, הרעילות והאימונוגניות המובנות של וירוסים מגבילות קשות את יישומם למתן חוזר in vivo. אתגר נוסף הוא קיבולת המטען המוגבלת של וקטורים ויראליים, המונעת הולכה סימולטנית של מספר גנים.
מערכות הובלה לא-ויראליות של mRNA נותנות מענה יעיל לחסרונות אלו. הן נמנעות משילוב בגנום המארח ובכך עוקפות סיכונים רבים. פעולתן הזמנית מונעת רעילות חוץ-מטרה (off-target toxicity), ומאפשרת ביטוי CAR-T תאי קצר-טווח ובקרתי, ובכך מפחיתה תופעות לוואי וסיכוני בטיחות. בין המערכות הלא-ויראליות, ננו-חלקיקים ליפידיים (LNPs) מציעים גישה בטוחה יותר. הם מתגברים על מגבלות הגודל של וקטורים ויראליים. LNPs פותרים גם בעיות של מוטציות השחלה ואימונוגניות. עובדה זו ממצבת אותם כמועמדים מבטיחים בטיפול בתאי CAR-T, עם פוטנציאל להפחית רעילות, לשפר את הבטיחות ולהוריד עלויות7.
מחקרים עדכניים על אימונותרפיה לגידולים מוצקים מתמקדים בעיקר באופטימיזציה של פורמולציות LNP, מודיפיקציה ממוקדת והנדסת רצפי mRNA במודלים שונים של סרטן, כולל מלנומה8, סרטן השד וסרטן המעי הגס9. מאמצים הופנו גם לבניית מקרופאגים בעלי קולטן אנטיגן כימרי (CAR-M)10 ותאים דנדריטיים (CAR-DC)11 באמצעות מערכות הולכה של LNP כדי לפרוץ את המחסומים הפיזיים המורכבים ואת הסביבה המיקרו-גידולית (TME) המדכאת את מערכת החיסון של גידולים מוצקים. הפלטפורמה המוצגת כאן מספקת מערכת הולכה לא-ויראלית ורב-גונית של mRNA המתאפיינת במודולריות גבוהה. באמצעות החלפה פשוטה של רצף ה-mRNA, ניתן להתאים פלטפורמה זו במהירות למודלים של גידולים מוצקים המכוונים לאנטיגנים אחרים, או להרחיבה לתחומי טיפול שאינם אונקולוגיים, כגון מחלות אוטואימוניות, מחלות קרדיו-וסקולריות ומחלות פיברוטיות.
עם זאת, נותר פער טכני בטיפולים בסרטן קיבה המשתמשים בפלטפורמות אלו: מחקרים קודמים התמקדו בעיקר בעריכה של תאי מיאלואיד, בעוד שאסטרטגיות לתכנות מחדש יעיל של תאי T in vivo נותרו במידה רבה בשלב החקירה. כדי לגשר על פער זה, פרוטוקול זה מפרט שיטה ליצירת תאי CAR-T זמניים via הובלה של mRNA באמצעות LNP. גישה זו שואפת להתגבר על המגבלות הגלומות בטיפולי CAR-T קונבנציונליים, הכוללות עלויות גבוהות, תהליכי ייצור מורכבים ורעילות מערכתית, ובכך להציע חלופה טיפולית יעילה ונגישה יותר עבור מטופלים. הודגם כי טרנספקציה של תאי T עם רצף mRNA אופטימלי המקודד ל-CAR ספציפי המכוון ל-Claudin18.2 מאפשרת ביטוי חזק של CAR על פני השטח של התא, מה שמכוון את תאי ה-T השונו להפעיל פעילות ציטוטוקסית ממוקדת נגד תאי גידול ספציפיים. פרוטוקול זה בנוי מחמישה חלקים נפרדים: שעתוק in vitro של CAR mRNA, הכנה ואפיון של LNP, הפעלה וטרנספקציה של תאי T, זיהוי ביטוי CAR, והערכה של יעילות ציטוליטית של תאי CAR-T in vitro ו-in vivo.
בהשוואה לטכנולוגיות קיימות להעברת mRNA-LNP, החדשנות המתודולוגית המרכזית של פרוטוקול זה טמונה באופטימיזציה קינטית של ביטוי ארעי. בוצעה אופטימיזציה סינרגית של ה-5' UTR, ה-3' UTR, ה-5' Cap וזנב poly(A) באורך 120-bp. תכנון מותאם זה מווסת את זמן מחצית החיים של ה-mRNA בתוך מיקרו-סביבת הגידול, ובכך משיג תרגום יעיל ביותר בתוך חלון טיפולי מוגדר, ולאחריו פירוק בטוח. פלטפורמה זו, המאופיינת ביצירה מהירה וארעית של CAR, משמשת כניסוח "off-the-shelf" לשימוש מיידי, ובכך מונעת את התקדמות המחלה במהלך חלון הייצור הממושך הנדרש לטיפולים קונבנציונליים. יתרה מכך, פרופיל ביטוי ארעי זה מציע יתרון בטיחותי שניתן לשלוט בו כאשר המטרה היא אנטיגנים בעלי פוטנציאל לרעילות "on-target, off-tumor", או עבור מטופלים שאינם מסוגלים לסבול תסמונת שחרור ציטוקינים (CRS) חמורה הקשורה לטיפולי CAR-T קונבנציונליים.
למרות היתרונות העמוקים של יצירת תאי CAR-T באופן in vivo in situ, ובמיוחד ביטול התהליכים המורכבים של ייצור ex vivo והפחתת הנטל הכלכלי, קיימות מגבלות מסוימות. במחזור הדם המערכתי, LNPs נוטים להצטברות לא ספציפית בכבד ולהפנמה מהירה על ידי מקרופאגים ותאים דנדריטיים. ללא רכיבי תargeting ספציפיים המכוונים לתאי T, יעילות הטרנספקציה של אוכלוסיית תאי ה-T המיועדת נפגעת בהכרח. יתרה מכך, עם הכניסה לרקמת הגידול, תאי CAR-T שנוצרו in situ נחשפים ל-TME העוין; בתנאים היפוקסיים, חומציים ומדכאי חיסון, תאי T אלו רגישים מאוד לתשישות חיסונית, ובכך מוגבלת יכולתם הציטוטוקסית. בנוסף, בעוד שהאופי החולף של ביטוי mRNA משפר את הבטיחות, הוא מגביל את משך חלון הטיפול. כדי להשיג יעילות אנטי-גידולית מתמשכת, נדרשים לעיתים קרובות מתנים לסירוגין וחוזרים. כתוצאה מכך, מחקרים עתידיים יתמקדו בטיפול במגבלות אלו על ידי שיפור יעילות ההולכה של LNPs כדי להשיג טרגוט מדויק וספציפי לשושלת התאים.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל ניסויי החיות אושרו על ידי ועדת האתיקה לבעלי חיים במעבדה בבית החולים העשירי של שנגחאי (מספר אישור: SHDSYY-2025-P085; תאריך אישור: 1 בינואר 2025). מחקר זה עומד בחוקים, בתקנות ובדרישות המוסדיות המקומיות. נעשה שימוש בעכברות NSG בגילאי 6–8 שבועות. תאי PBMC (תאים חד גרעיים של דם פריפרי), ששימשו במחקר זה, התקבלו ממקור מסחרי. הרכיבים והציוד ששימשו במחקר זה מופיעים בטבלת החומרים.
1. הכנת mRNA של CAR
- הכנת תבניות DNA לינאריות
הערה: הפלסמיד המכיל את רצף ה-CAR הולינאר בשימוש באנזים ההגבלה BspQI. אנזים ההגבלה הנבחר צריך להכניס את מקטע ה-DNA במורד של אזור הפרומוטור בצד ימין ולא להכיל אתרי זיהוי בתוך מקטע ה-DNA המוכנס.- הוסיפו מים מזוקקים פעמיים (ddH2O), באפר 10×, תבנית DNA ואנזים BspQI בסדר המפורט בטבלה 1. דגרו ב-50 °C למשך 2 שעות, ולאחר מכן נטרלו את האנזים ב-80 °C למשך 20 דקות. ניתן לשמור את הפלסמיד הלינארי ב-4 °C.
- בצעו את תגובת עיכול ההגבלה בפסולת מיקרוצנטריפוגה סטרילית. הוסיפו מים מזוקקים פעמיים, באפר לאנזים הגבלה, תבנית DNA של פלסמיד ואנזים הגבלה BspQI בסדר ובנפחים הספציפיים המצוינים בטבלה 1.
- ערבבו בעדינות את תערובת התגובה על ידי פיפטינג למעלה ולמטה, ולאחר מכן סובבו קצרות במיקרוצנטריפוגה. דגרו את התערובת ב-50 °C למשך 2 שעות במכשיר תרמו-סייקלר כדי לאפשר עיכול מלא. נטרלו את אנזים ההגבלה על ידי דגירה של התערובת ב-80 °C למשך 20 דקות.
הערה: רשות - שמרו את הפלסמיד הלינארי ב-4 °C לשימוש קצר טווח או המשיכו מיד לבקרת איכות.
- הכינו ג'ל אגרוזה 1% על ידי שקילת 0.25 g של אגרוזה והמסה שלה ב-25 mL של באפר 1× Tris–Acetate–EDTA (TAE). הוסיפו 2.5 µL של Gel Green וערבבו היטב. הרתיחו, ולאחר מכן נערו בעוצמה. חזרו על תהליך זה שלוש פעמים לפני מזיגת התערובת לתבנית יציקת הג'ל. הריצו ב-10 V למשך 10 דקות, ולאחריו ב-130 V למשך 20 דקות.
- בצעו ויזואליזציה בעזרת אור על-סגול (UV) כדי לאמת עיכול מלא. בהשוואת מיקומי הפסים לאלו של סמני DNA ולפלסמיד שאינו חתוך, הפלסמיד הלינארי הראה שני פסים מובחנים בלבד התואמים למשקולות המולקולריות החזויות שלו: רצף המטרה היה בערך 1,791 bp, והמקטע הנותר היה בערך 2,535 bp.
- טהרו את תוצרי העיכול באמצעות חרוזי בידוד DNA.
- בצעו וורטקס לחרוזים המגנטיים כדי להבטיח ערבוב יסודי. פיפטו את הנפח המצוין של חרוזים מגנטיים אל דגימת ה-DNA וערבבו בעדינות. דגרו בטמפרטורת החדר (RT) למשך 10 דקות כדי לאפשר קישור של ה-DNA לחרוזים.
- מקמו את הדגימה על מעמד מגנטי למשך 5 דקות. הסירו בזהירות את הנוזל העליון (supernatant). הוסיפו 20 µL של אתנול 80% שהוכן טרי לשטיפה. דגרו ב-RT למשך 30 שניות והסירו בזהירות את הנוזל העליון. חזרו על שלב זה פעמיים.
- השאירו את הדגימה על המעמד המגנטי בטמפרטורת החדר עם מכסה פתוח למשך 5 דקות לייבוש. הסירו את הדגימה מהמעמד המגנטי. הוסיפו 1 µL ddH2O ללא נוקלאז. ערבבו היטב על ידי פיפטינג למעלה ולמטה. דגרו בטמפרטורת החדר למשך 2 דקות. אפשרו לתמיסה לשקער על המעמד המגנטי למשך 5 דקות עד שיה צלולה.
- העבירו בזהירות את הנוזל העליון למבחנה חדשה לצנטריפוגה ללא נוקלאז. השתמשו בספקטרופוטומטר למדידת ריכוז ה-DNA; יש להשתמש ב-DNA שהתקבל מיד לטרנסקריפציה in vitro. חשבו את קצב ההשגחה על בסיס כמות ה-DNA המטוהר חלקי כמות ה-DNA הראשונית שהוספה.
- הוסיפו מים מזוקקים פעמיים (ddH2O), באפר 10×, תבנית DNA ואנזים BspQI בסדר המפורט בטבלה 1. דגרו ב-50 °C למשך 2 שעות, ולאחר מכן נטרלו את האנזים ב-80 °C למשך 20 דקות. ניתן לשמור את הפלסמיד הלינארי ב-4 °C.
- טרנסקריפציה In Vitro (IVT)
- הפשירו את כל רכיבי הערכה של ערכה לטרנסקריפציה in vitro וסגירת RNA (capping) המבוססת על T7 RNA polymerase על קרח (למעט T7 RNA Polymerase Mix, שיש לשמור ב-20 °C- עד לשימוש). בצעו וורטקס קצר לבאפרים וסובבו במיקרוצנטריפוגה.
- הרכיבו את תערובת תגובת ה-IVT במבחנת מיקרוצנטריפוגה סטרילית ללא נוקלאז בטמפרטורת החדר בהתאם לנפחים המפורטים בטבלה 2. הוסיפו את הרכיבים בסדר הרשום, וסיימו עם תערובת אנזים T7.
- ערבבו את תערובת התגובה היטב אך בעדינות על ידי נקישה של המבחנה או פיפטינג למעלה ולמטה. סובבו קצרות כדי לאסוף את הנוזל בתחתית. דגרו את התערובת ב-37 °C למשך 2 שעות בתרמו-סייקלר.
- הוסיפו 2 µL של אנזים DNase I ישירות לתגובת ה-IVT כדי לפרק את תבנית ה-DNA השארית. ערבבו בעדינות ודגרו ב-37 °C למשך 15 דקות נוספות. המשיכו מיד לשלב הטהרה.
- טהרו את תוצר ה-RNA שהתקבל באמצעות חרוזי בידוד RNA לפי אותו הליך שבו השתמשתם לטהרת תוצרי עיכול ה-DNA.
- המסו ב-20 µL מים ללא אנזימים. השתמשו בספקטרופוטומטר NanoDrop למדידת ריכוז ה-mRNA ויחס הבליעה (OD). השתמשו ב-1 µL של מים ללא נוקלאז כביקורת בלנק (blank). יחס ה-OD260/280 צריך להיות בין 1.8 ל-2.1, ויחס ה-OD260/230 צריך להיות בין 2.0 ל-2.4.
הערה: אם היחסים חורגים מטווחים אלה, הדבר מעיד על זיהום ויש לטהר את הדגימה שוב. - השתמשו במערכת אלקטרופורזה קפילרית אוטומטית לניתוח חומצות גרעין וחלבונים כדי לנתח את האורך והשלמות של ה-CAR mRNA הסינתטי. פרופיל האלקטרופורזה צריך להראות שיא בודד וחד התואם לגודל הצפוי של CAR mRNA באורכו המלא (בערך 1800 nt), ללא זנבות ועם קו בסיס שטוח ונקי. לא אמורים להופיע פסים מפוזרים משמעותיים בעלי משקל מולקולרי נמוך או מספר שיאים; אחרת, הדבר מעיד על פירוק ה-RNA.
- חלקו את ה-CAR mRNA המאומת לאליקוטים כדי למנוע מחזורי הקפאה-הפשרה חוזרים, ושמרו אותו ב-80 °C- לשימור לטווח ארוך.
- המסו ב-20 µL מים ללא אנזימים. השתמשו בספקטרופוטומטר NanoDrop למדידת ריכוז ה-mRNA ויחס הבליעה (OD). השתמשו ב-1 µL של מים ללא נוקלאז כביקורת בלנק (blank). יחס ה-OD260/280 צריך להיות בין 1.8 ל-2.1, ויחס ה-OD260/230 צריך להיות בין 2.0 ל-2.4.
2. הכנה ואפיון של LNPs
- המס SM102, כולסטרול, 1,2-Distearoyl-sn-glycero-3-phosphocholine (DSPC) ו-DMG-PEG20 באתנול אנहाइडרס להכנת תמיסת מלאי בריכוז של 10 מ"ג/מ"ל. הכן את הפאזה האורגנית באמצעות יחס של 1:50:38.5:10:1.5.
- חשבו את כמות ה-mRNA הנדרשת על בסיס יחס של 8:1 בין קבוצות אמינו N טעונות חיובית לקבוצות פוספט P טעונות שלילית. המיסו את ה-mRNA בתמיסת נתרן ציטראט להכנת הפאזה המימית. שמרו על יחס של 1:3 בין הפאזה האורגנית לפאזה המימית, עם קצבי זרימה של 1.5 מ"ל/דקה לכל אחת. הכינו LNPs באמצעות התקן מיקרופלואידי מסוג herringbone mixer.
- ראשית, שטפו פעם אחת את הצינורית ואת השב המיקרופלואידי (ערב herringbone) באתנול ללא מים (anhydrous ethanol) ובבתמיסת נתרן ציטראט. לאחר ערבוב הפאזות האורגנית והמימיות שהוכנו באמצעות ניקוז (purging), שאבו אותן באמצעות מזרק של 1 מ"ל; היחס בין הפאזה האורגנית למימית הוא 1:3. טענו אותן, בהתאמה, לשני התעלים של משאבת המזרקים.
- הגדירו את קצבי הזרימה עבור הפאזות האורגנית והמיות. הוסיפו 5 מ"ל של תחביב נתרן ציטרט (50 mM) לפח השאיבה (centrifuge tube) המחוברת ליציאה. לאחר שטיפה של שאריות תמיסת השטיפה מהצינוריות, הפעילו את המכשיר ואספו את האלוט (eluate).
- העבירו את ה-LNPs המפוזרים בתמיסת נתרק סיטראט (sodium citrate) לשפופרת אולטרה-פילטרציה של 10 kDa, וסבבו בצנטריפוגה במהירות של 40 × ג׳ למשך 5–10 דקות, לאחר מכן הוסיפו 2.5 מ"ל של תמיסת סודיום ציטראט ו-2.5 מ"ל של תמיסת 1× TBS כדי לפרוס אותם מחדש, וחזרו על הצנטריפוגה פעם אחת.
- הוסיפו 1 מ"ל של תמיסת נתרן ציטראט ו-4 מ"ל של תמיסת 1× TBS כדי לסבך מחדש את החלקיקים, וסובבו שוב בצנטריפוגה. אחסנו את ה-LNPs המרוכזים ב-1 מ"ל של תמיסת TBS ב- 4 °C לפרק זמן קצר.
- השתמש בערכה למדידת כמות RNA המבוססת על פלואורסצנציה כדי למדוד את תכולת ה-mRNA ב-LNP לפני ואחרי דה-המולסיה; ההפרש בין שני הערכים מייצג את יעילות הכלילה של ה-LNP.
- הכינו באפר TE בריכוז 1×, תמיסת עבודה של הגשוש (probe) ו-Triton X-10 בריכוז 2%. דללו את סטנדרט ה-mRNA (100 µg/mL) ל- 2 µg/mL באמצעות באפר TE בריכוז 1×, והכינו עקום סטנדרט עם דגימת בקרה (blank) וריכוזים של 10, 20, 10, 50 ו-10 ננוגרם/מ"ל. ערבבו במערבל וורטקס (Vortex). 4 µL של תמיסת LNP עם 16 µL מסלול Triton X-10 בריכוז 2%, ולאחר מכן להמתין 10 דקות.
- הוסף 5 µL של תמיסת ה-LNP שפורקה מהשאיולה ל- 95 µL של באפר TE בריכוז 1×. הוסף 100 µL של תמיסת העבודה של הגשש לכל בארי עקומת הסטנדרט והדגימות, ערבב היטב, הגן מאור והעבר ללוח 96 באריים בעל תחתית שחורה.
- לאחר הדגירה, מדדו את עוצמת הפלואורסצנציה (Ex480/Em520) באמצעות קורא מיקרו-פלטה (microplate reader). החסירה את ערכי הבליעה של בארי הבלנק (blank wells) מערכי הבארי של עקומת הסטנדרטים ומבארי הדגימות, בהתאמה, כדי לשרט את עקומת הסטנדרטים.
- השתמשו בעקום הסטנדרטי כדי לחשב את ריכוזי ה-mRNA בתמיסת ה-LNP לפני ואחרי דה-המולסיפיקציה, הכפילו ערכים אלה ב-20 כדי לקבל את הריכוזים לפני הדילול, והציבו אותם בנוסחת החישוב:
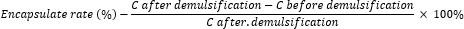
- קח 10 µL של LNP ודללו אותו ב-1 מ"ל של תמיסת TBS. קבעו את גודל החלקיקים, את פוטנציאל זטא ואת ערך מדד הפולידיספרסיות (PDI) באמצעות מנתח גודל חלקיקים של Malvern.
3. הפעלה והטרנספקציה של תאי T
- מיון תאי T
- קחו PBMCs בריכוז של 1 × 10⁷/mL, השעו אותם שוב ב-37 °C, הוסיפו 10 mL של באפר להפרדת תאים אימונומגנטית, ערבבו היטב, סבבו בצנטריפוגה ב-50 × g למשך 8 דקות, וספרו את התאים.
- השעו את התאים שוב וכוונו את הצפיפות ל-5 × 10⁷ תאים/mL, הוסיפו 50 µL של Isolation Cocktail לכל mL של תרחיף תאים והדגירו בטמפרטורת החדר למשך 5 דקות; הוסיפו 40 µL של חלקיקים מגנטיים לבידוד תאים אימונומגנטי לכל mL של תרחיף תאים וערבבו; הניחו את המבחנה על מעמד מגנטי והדגירו בטמפרטורת החדר למשך 10 דקות.
- העבירו בזהירות את תרחיף התאים המועשר למבחנת צנטריפוגה חדשה באמצעות פיפטה. הסירו את המבחנה מהמגנט, הוסיפו 4 mL של באפר טרי להפרדת תאים אימונומגנטית, והדגירו למשך 5 דקות נוספות לסב הפרדה שני.
- שטפו את התאים במצע גידול לתאי T (RPMI 1640 GlutaMAX + 10% Fetal Bovine Serum + 1% Penicillin/Streptomycin + 10 IU/mL rhIL-2 + 5 ng/mL rhIL-7 + 5 ng/mL rhIL-15), לאחר מכן סבבו בצנטריפוגה וספרו. הוסיפו מצע גידול לתאי T כדי להתאים את צפיפות התאים ל-1 × 10⁶/mL והוסיפו 12.5 µL של חרוזי מגנט להפעלת תאי T אנושיים CD3/CD28. הדגירו ב-37 °C באינקובטור עם 5% CO₂ למשך 48 שעות כדי להפעיל את התאים.
- זיהוי פרמטרי הפעלה של תאי T
- העבירו 20 µL של תאי T שהופעלו למשך 48 שעות למבחנה של מיקרו-צנטריפוגה בנפח 1.5 mL. הסירו את חרוזי המגנט להפעלת CD3/CD28, הוסיפו 1 mL של באפר FACS לשטיפה, ערבבו בעדינות באמצעות פיפטינג, ולאחר מכן סבבו בצנטריפוגה ב-50 × g, ב-4 °C למשך 5 דקות. הסירו בזהירות את העלייה (supernatant) וחזרו על הפעולה 2–3 פעמים.
- השעו את התאים ב-10 µL של באפר FACS. הוסיפו 1 µL מכל אחד של נוגדני anti-human CD3, anti-human CD25 ו-anti-human CD69. ערבבו בעדינות את הדגימות והדגירו על קרח בחושך למשך 30 דקות.
- הוסיפו 1 mL של באפר FACS לשטיפת התאים, סבבו בצנטריפוגה, לאחר מכן הסירו בזהירות את העלייה, הוסיפו 10 µL של באפר FACS ו-0.1 µL של LIVE/DEAD fixable dead cell stain, והדגירו על קרח בחושך למשך 10 דקות.
- השעו את התאים ב-1 mL של באפר FACS וסבבו בצנטריפוגה ב-50 x g, ב-4 °C למשך 5 דקות, ולאחר מכן הסירו בזהירות את העלייה. חזרו על הפעולה 2–3 פעמים. השליכו את העלייה והשעו את התאים ב-20 µL של באפר FACS. נתחו את התאים באמצעות ציטומטריה זורמת (flow cytometry).
- בחרו את תאי המטרה באמצעות FSC-A ו-SSC-A, בודדו תאים בודדים באמצעות FSC-A ו-FSC-H, וזהו תאים חיים באמצעות LIVE/DEAD Cell Discrimination Dye (LIVE/DEAD). השוו את יחסי ה-CD25 וה-CD69 בין תאי T לא פעילים לתאי T פעילים.
- טרנספקציית LNP של תאי T
- בהתבס על חישוב יעילות הכליסה (encapsulation efficiency), קחו את נפח ה-LNP הנדרש בהתאם לכמות ה-mRNA. ראשית, סבבו בצנטריפוגה את ה-LNP המומס ב-TBS כדי להפרידו, ולאחר מכן העבירו אותו למצע RPMI 1640.
- לאחר 48 שעות, השתמשו במעמד מגנטי כדי להסיר את חרוזי המגנט להפעלת CD3/CD28. סבבו בצנטריפוגה ב-50 × g למשך 8 דקות, ספרו, והוסיפו מצע גידול לתאי T כדי להתאים את הצפיפות ל-2 × 10⁶ תאים/mL. הוסיפו 1 µg של LNP-mRNA לכל 1 × 10⁵ תאים. ערבבו בעדינות באמצעות פיפטינג והדגירו ב-37 °C באינקובטור עם 5% CO₂ למשך 4–6 שעות.
4. זיהוי ביטוי CAR
- 4–6 שעות לאחר הטרנספקציה, ערבבו בעדינות את תאי ה-CAR-T באמצעות פיפטה. העבירו לפחות 2 × 10⁵ תאים לפרועת מיקרוצנטריפוגה של 1.5 mL.
- הוסיפו 1 mL של FACS buffer לפרועת המיקרוצנטריפוגה של 1.5 mL. ערבבו באמצעות פיפטה, ולאחר מכן סובבו בצנטריפוגה במהירות של 50 x g למשך 5 דקות בטמפרטורה של 4 °C. הסירו בזהירות את העילאי. חזרו על שלב זה 2–3 פעמים.
- שעבדו מחדש את משקע התאים ב-100 µL של FACS buffer וחלקו את הדגימה לקבוצת ביקורת ולקבוצה ניסיונית, כך שכל אחת תכיל 50 µL. הוסיפו 1 µL של הנוגדן G4S-linker לזיהוי CAR לתמיחת התאים בקבוצה הניסיונית, ערבבו בעדינות את הדגימה והדרימו על קרח בחושך למשך 30 דקות. עבור קבוצת הביקורת, אל תוסיפו את הנוגדן; הדרימו על קרח.
- שאבו באמצעות פיפטה 0.2 µL של צבע LIVE/DEAD fixable לתאי מתים (10×) ודללו אותו ב-10 µL של FACS buffer; לאחר מכן, העבירו בפיפטה 50 µL לכל אחת מהקבוצות (ביקורת וניסיונית), ערבבו בעדינות את הדגימה והדרימו על קרח בחושך למשך 10 דקות.
- שטפו את התאים עם 1 mL של FACS buffer. סובבו בצנטריפוגה במהירות של 500 x g למשך 5 דקות בטמפרטורה של 4 °C. הסירו בזהירות את העילאי. חזרו על הפעולה 2–3 פעמים.
- שפכו את העילאי ושעבדו מחדש את התאים ב-20 µL של FACS buffer. נתחו את התאים באמצעות ציטומטריה של זרימה (flow cytometry).
- העריכו את ביטוי ה-CAR באמצעות אסטרטגיית ה-gating הבאה: בצעו gating לתאי המטרה באמצעות גרף FSC-A ו-SSC-A, בצעו gating לתאים בודדים באמצעות גרף FSC-A ו-FSC-H, ובצעו gating לתאים חיים באמצעות צבע LIVE/DEAD fixable.
הערה: בהתבס על בחירת התאים שנצבעו כחיוביים לנוגדן G4S-linker בעמודה הימנית ביותר של אוכלוסיית התאים החיים בקבוצת הביקורת, האחוז המוצג עבור הקבוצה הניסיונית מייצג את שיעור החיוביות ל-CAR.
5. ניתוח ציטוטוקסיות של תאי CAR-T In vitro
- עייכו תאי גידול מסוג NUGC4 ו-NCl-N87 המבטאים לוציפראז באמצעות טריפסין. צנטריפוגו ב-30 x g למשך 5 דקות. הוסיפו 1 mL של מצע RPMI 1640, ספרו והתאימו את צפיפות התאים ל-5 × 10⁴ תאים/mL. חלקו 10 µL לכל באר בלוח 96-בארים. הוסיפו נפח שווה של תמיסת סליין בבפר פוספט (PBS) לבארים הנותרות כדי למנוע התאיידות. הדגירו באינקובטור בטמפרטורה של 37 °C עם 5% CO₂ למשך 24 שעות.
- חשבו את שיעור החיוביות ל-CAR על סמך תוצאות ציטומטריה של זרימה. הוסיפו תאי CAR-T או תאי T ביחסי תאי אפקטור למטרה של 10:1, 5:1, 3:1, 1:1, 1:3 ו-1:5 לבארים המכילות תאי גידול (10 µL/באר). הדגירו ב-37 °C עם 5% CO₂ למשך 24 שעות.
- השתמשו בערכה לבדיקת הגן המדווח לוציפראז של גחליות (firefly luciferase reporter gene assay kit) כדי לזהות את אות הלוציפראז מהתאי הגידול שנותרו, בהתאם למדריך המוצר, וחשבו את שיעור ההריגה: (1 - (ערך RLU של תאי אפקטור/ערך RLU של תאי מטרה)) × 10%.
6. תיקוף תפקודי In vivo של תאי CAR-T
- לאחר תקופת אקלום של שבוע אחת לפני ההחדרה, הזרק לכל עכבר תת-עורי בבית השחי 5 × 10⁶ תאי NUGC4. מדדו את גודל הגידול מדי יום, וחשבו את נפח הגידול באמצעות הנוסחה: V (מ"מ3) = L × וואט2/2 (כאשר L הוא הקוטר הארוך ביותר של הגידול ו-W הוא הקוטר הקצר ביותר) עד שהגידול הגיע ל-10 מ"מ3.
- חלק את העכברים באופן אקראי לארבע קבוצות: שלוש קבוצות טיפול שיקבלו מינונים שונים וקבוצת ביקורת שתקבל PBS, כאשר בכל קבוצה יהיו שלושה עכברים.
הערה: חוק העיוורון לא יושם. - לאחר דגירה 10 µg של mRNA עם 1 × 10⁶ תאי T מופעלים למשך 4 שעות, הכין מינונים של 5 × 10⁵ תאים/עכבר, 1 × 10⁶ תאים/עכבר, ו-2 × 10⁶ תאים/עכבר. מזריקים את תערובת ה-LNP ותאי ה-T לעכברים דרך הזרקה לווריד הזנב, כאשר כל עכבר קיבל 100 µL נפח של תאים או PBS. המנות ניתנו בימים 1, 4, 7 ו-10, בסך הכל ארבע מנות.
- מדדו את גודל הגידול בעכברים בימים 0, 2, 4, 6, 8, 10, 12 ו-14, חשבו את נפח הגידול והוציאו גרף של עקומת גדילה. הציגו את הנתונים כערך ממוצע ± SD. נתחו את ההבדלים בין הקבוצות באמצעות ניתוח שונות דו-כיווני (Two-way ANOVA) בעזרת תוכנה לסטטיסטיקה ולגרפים, בשילוב עם מבחן השוואות מרובות של Tukey. ns: לא מובהק סטטיסטית; *P < 0.05; **P < 0.01; ***P < 0.001; ****P < 0.0001.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
נעשה שימוש ברצף CAR המכוון ל-Claudin18.2, המורכב מהמקטע המשתנה בעל השירשור הבודד (scFv) מנוגד monoclonal אנושי למחצית ל-Claudin18.2, אזור הציר של CD8, האזור הטרנס-ממברנלי של CD28, הדומיין הקו-סטימולטורי ודומיין ההפעלה של CD3ζ. תבנית DNA המכילה את פרומוטר T7 וזנב poly A הוקמה על בסיס רצף זה לצורך שעתוק mRNA של CAR in vitro (איור 1A). אורך ה-mRNA של ה-CAR היה כ-180 bp, כפי שאומת באמצעות אלקטרופורזה קפילרית (איור 1B). פס בודד עם שיא חד וללא זנב, יחד עם קו ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
פרוטוקול זה מספק מערכת למסירת mRNA שאינה ויראלית הנמנעת משילוב בגנום המארח, ובכך עוקפת סיכונים רבים, כולל דחייה חיסונית. תפקודה הזמני מונע גם רעילות לא יעדית (off-target toxicity), ומאפשר ביטוי קצר טווח וניתן לבקרה בתאי CAR-T להפחתת תופעות לוואי וסיכוני בטיחות.
בוצע אופטימיזציה של עיצוב רצף ה-mRNA של ה-CAR כדי לווסת את יעילות התרגום שלו ואת משך הביטוי. ה-5'UTR, ה-3'UTR, ה-5'-Cap וזנב ה-poly(A) של מולקולת ה-mRNA מווסתים באופן סינרגטי את תרגום ה-mRNA ואת יציבותו12. בעיצוב...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים כי אין ניגודי עניינים
תודות
ברצוננו להביע את תודתנו לאוניברסיטת שנגחאי ולמעבדה המרכזית בבית החולים העשירי של שנגחאי על אספקת פלטפורמת המחקר עבור מחקר זה.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| אתנול מוחלט | Sigma-Aldrich | 459836 | פאזה אורגנית |
| אגרוז | Beyotime | ST004L | אלקטרופורזה של ג'ל |
| anti-G4S linker (B02H1) mAb PE | Hycells | GS-ARPE100 | זיהוי CAR |
| אנזים הגבלה BspQI | NEB | R0712 | ליניאריזציה של פלסמיד |
| BV421 Mouse Anti-Human CD25 | BD Biosciences | 564033 | סמן אקטיבציה |
| חרוזי אקטיבציה CD3/CD28 | Thermo Fisher Scientific | 11161D | אקטיבציה של תאי T |
| כולסטרול | Sigma-Aldrich | C8667 | ליפיד מבני |
| אינקובטור לתרבית תאים CO2 | Thermo Fisher / מקביל | 250i | עבור תרבית תאי T ותאי גידול |
| DMG-PEG2000 | Avanti Polar Lipids | 880151 | ליפיד PEGylated |
| חרוזי מגנט לבידוד DNA | SYNTHGENE | 10501-005 | טיהור DNA |
| DNase I (ללא RNase) | NEB | M0303L | הסרת תבנית DNA |
| DSPC | Avanti Polar Lipids | 850365 | פוספוליפיד |
| מנתח פיזור אור דינמי (DLS) | Malvern Panalytical | Zetasizer | עבור גודל LNP, PDI, פוטנציאל זטא |
| בופר EasySep | STEMCELL Technologies | 20144 | הפרדה מגנטית |
| סרום עגל עוברי (FBS) | Gibco | 10099-141 | תוסף לתרבית |
| FITC Mouse Anti-Human CD3 | BD Biosciences | 555332 | זיהוי תאי T |
| ציטומטר זרימה | BD Biosciences / מקביל | FACSCelesta / LSRFortessa | עבור CAR וסמן אקטיבציה |
| צבע לחומצות גרעיניות GelGreen | Biotium | 41005 | ויזואליזציה של DNA |
| צבע קיבוע LIVE/DEAD | Invitrogen | L34955 | צביעת חיוניות |
| ערכה לבדיקת לוסיפראז | Promega | E1500 | קריאת ציטוטוקסיות |
| מעמד להפרדה מגנטית | STEMCELL Technologies / מקביל | 18000 | עבור בידוד PBMCs ותאי T |
| ספקטרופוטומטר Nanodrop | Thermo Fisher Scientific | NanoDrop 2000 | עבור כימות DNA/RNA |
| עכברים נקבי NSG (6–8 שבועות) | Jackson Laboratory | 5557 | מודל in vivo |
| PBMCs | Shanghai Saili Biotechnology Company | ||
| מעגל תרמי ל-PCR | Bio-Rad / מקביל | T100 | עבור הגברה של DNA |
| PE Mouse Anti-Human CD69 | BD Biosciences | 557050 | אקטיבציה מוקדמת |
| פניצילין-סטרפטומייצין | Gibco | 15140-122 | אנטיביוטיקה |
| מנתח חומצות גרעיניות Qsep | BiOptic Inc. | Qsep100 | עבור ניתוח גודל/שלמות של mRNA |
| ערכת Quant-iT RiboGreen RNA | Invitrogen | R11490 | יעילות אנקפסולציה |
| RapidSpheres | STEMCELL Technologies | 15061 | סימון מגנטי |
| IL-15 אנושי רקומביננטי | PeproTech | 200-15 | תמיכה בפנוטיפ זיכרון |
| IL-2 אנושי רקומביננטי | PeproTech | 200-02 | הרחבת תאי T |
| IL-7 אנושי רקומביננטי | PeproTech | 200-07 | הישרדות תאי T |
| צנטריפוגה מקוררת | Eppendorf / מקביל | 5425R | עבור ריכוז LNP ועיבוד תאים |
| RNA 6000 Ladder | Thermo Fisher Scientific | AM7152 | אפיון RNA |
| ערכת מחסניות RNA (1pc) | Bioptic | C105110 | בקרת איכות RNA |
| חרוזי מגנט לבידוד RNA | SYNTHGENE | 10511-005 | טיהור mRNA |
| מים ללא RNase | Thermo Fisher Scientific | AM9937 | IVT וטיפול ב-RNA |
| RPMI 1640 GlutaMAX | Gibco | 61870-036 | תרבית תאי T |
| SM-102 | MedChemExpress / מקביל | HY-112563 | ליפיד יוניזבילי |
| תערובת לבידוד תאי T | STEMCELL Technologies | 15061 | בידוד תאי T CD3+ |
| ערכת T7 Co-Transcription ו-Cap-Addition | SYNTHGENE | 10111-3011 | סינתזת mRNA ב-IVT |
| בופר TBS | Gibco | 3005 | אחסון LNP |
| Trypsin-EDTA | Gibco | 25200-056 | ניתוק תאים |
| מערכת דימוי ג'ל UV | Syngene / מקביל | NuGenius/NuGenius+ | לאימות עיכול DNA |
מקורות
- Bray F, Ferlay J, Soerjomataram I, Siegel RL, Torre LA, Jemal A. Global cancer statistics 2018: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2018;68(6):394-424.
- Saez-Ibañez AR, Upadhaya S, Partridge T, Shah M, Correa D, Campbell J. Landscape of cancer cell therapies: trends and real-world data. Nat Rev Drug Discov. 2022;21(9):631-632.
- Dunbar CE, High KA, Joung JK, Kohn DB, Ozawa K, Sadelain M. Gene therapy comes of age. Science. 2018;359(6372):eaan4672.
- Jiang H, Shi Z, Wang P, Li X, Hou W, Zhang H, et al. Claudin18.2-specific chimeric antigen receptor engineered T cells for the treatment of gastric cancer. J Natl Cancer Inst. 2019;111(4):409-418.
- Baker DJ, Arany Z, Baur JA, Epstein JA, June CH. CAR T therapy beyond cancer: the evolution of a living drug. Nature. 2023;619(7971):707-715.
- Raguram A, Banskota S, Liu DR. Therapeutic in vivo delivery of gene editing agents. Cell. 2022;185(15):2806-2827.
- Khawar MB, Afzal A, Si Y, Sun H. Steering the course of CAR T cell therapy with lipid nanoparticles. J Nanobiotechnology. 2024;22(1):380.
- Hamilton AG, Thatte AS, Xu J, Mai D, Billingsley MM, Mitchell MJ, et al. High-throughput in vivo screening using barcoded mRNA identifies lipid nanoparticles with extrahepatic tropism for in situ immunoengineering. Adv Mater. 2026;38(13):e14370.
- Żak MM, Yoo J, Utrero-Rico A, Kim J, Smith R, Wang L, et al. A tumor-selective mRNA system enables precision cancer treatment. Mol Ther. 2026;34(2):1066-1083.
- Han JH, Fagan E, Yeom K, Park JH. In situ chimeric antigen receptor macrophage therapy via co-delivery of mRNA and immunostimulant. ACS Nano. 2025;19(48):40798-40816.
- Chen X, Li X, Yan Y, Wang J, Liu Y, Zhang Q, et al. Splenic dendritic cell-targeting mRNA transfection of H-type ionizable lipid-based LNPs for enhancing tumor immunotherapy. Bioact Mater. 2026;61:429-447.
- Roundtree IA, Evans ME, Pan T, He C. Dynamic RNA modifications in gene expression regulation. Cell. 2017;169(7):1187-1200.
- Ikeda RA, Richardson CC. Interactions of the RNA polymerase of bacteriophage T7 with its promoter during binding and initiation of transcription. Proc Natl Acad Sci U S A. 1986;83(11):3614-3618.
- Holtkamp S, Kreiter S, Selmi A, Simon P, Koslowski M, Huber C, et al. Modification of antigen-encoding RNA increases stability, translational efficacy, and T-cell stimulatory capacity of dendritic cells. Blood. 2006;108(13):4009-4017.
- Tada M, Abe N, Inagaki M, Sato K, Yamaguchi T, Tanaka H, et al. The effect of cap structure and poly(A) positioning on mRNA translation efficiency. Angew Chem Int Ed Engl. 2025;64(50):e202514124.
- Ye Z, Chen J, Zhao X, Li Y, Wang X, Zhang Y, et al. In vitro engineering chimeric antigen receptor macrophages and T cells by lipid nanoparticle-mediated mRNA delivery. ACS Biomater Sci Eng. 2022;8(2):722-733.
- Billingsley MM, Singh N, Ravikumar P, Zhang R, June CH, Mitchell MJ. Ionizable lipid nanoparticle-mediated mRNA delivery for human CAR T cell engineering. Nano Lett. 2020;20(3):1578-1589.
- Billingsley MM, Hamilton AG, Mai D, Singh N, Zhang R, Lee Y, et al. Orthogonal design of experiments for optimization of lipid nanoparticles for mRNA engineering of CAR T cells. Nano Lett. 2022;22(1):533-542.
- Zong Y, Lin Y, Wei T, Cheng Q. Lipid nanoparticle (LNP) enables mRNA delivery for cancer therapy. Adv Mater. 2023;35(51):e2303261.
- Sun D, Lu ZR. Structure and function of cationic and ionizable lipids for nucleic acid delivery. Pharm Res. 2023;40(1):27-46.
- Su FY, Zhao QH, Dahotre SN, Li X, Wang Y, Zhang Z, et al. In vivo mRNA delivery to virus-specific T cells by light-induced ligand exchange of MHC class I antigen-presenting nanoparticles. Sci Adv. 2022;8(8):eabm7950.
- Herrera-Barrera M, Ryals RC, Gautam M, Patel A, Kim S, Wilson J, et al. Peptide-guided lipid nanoparticles deliver mRNA to the neural retina of rodents and nonhuman primates. Sci Adv. 2023;9(2):eadd4623.
- Kheirolomoom A, Kare AJ, Ingham ES, Mahakian LM, Tam SM, Silvestrini MT, et al. In situ T-cell transfection by anti-CD3-conjugated lipid nanoparticles leads to T-cell activation, migration, and phenotypic shift. Biomaterials. 2022;281:121339.
- Tombácz I, Laczkó D, Shahnawaz H, Muramatsu H, Natesan A, Yadegari A, et al. Highly efficient CD4+ T cell targeting and genetic recombination using engineered CD4+ cell-homing mRNA-LNPs. Mol Ther. 2021;29(11):3293-3304.
- Rurik JG, Tombácz I, Yadegari A, Méndez Fernández PO, Shewale SV, Li L, et al. CAR T cells produced in vivo to treat cardiac injury. Science. 2022;375(6576):91-96.
- Shi D, Toyonaga S, Anderson DG. In vivo RNA delivery to hematopoietic stem and progenitor cells via targeted lipid nanoparticles. Nano Lett. 2023;23(7):2938-2944.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב