פרוטוקול זה נועד להעריך התפתחות מלנומה בזנוגרפטים של דגי זברה באמצעות תהודה פרמגנטית אלקטרונית in vivo (ספקטרוסקופיה לזיהוי וניתוח רדיקלים של מלנין), ומציע גישה חדשנית למחקר פרה-קליני ולהערכה טיפולית.
מאמר שיטה
תהודה פרמגנטית של אלקטרון בתחום X למעקב אחר שינויים רדיקליים הקשורים למלנין בזנוגרפטים במלנומה של דגי זברה בחיים
במאמר זה
סיכום
תקציר
פרוטוקול זה מציג יישום חדש ב-vivo של ספקטרוסקופיית תהודה פרמגנטית אלקטרונית בתחום X (9.5 GHz) למעקב אחר דינמיקת רדיקליים הקשורה למלנין במודלים של מלנומה של דגי זברה (Danio rerio). מטרת שיטה זו היא לאפשר הערכה ישירה, ללא תוויות וכמותיות של שינויים רדוקסידו הקשורים למלנין במהלך התפתחות העובר, ואינטראקציות גידול–מארח במודל חולייתנים רלוונטי פיזיולוגית.
על ידי ניצול התכונות הפרמגנטיות הפנימיות של המלנין, גישה זו מספקת מידע ביוכימי משלים שלא ניתן לקבל באמצעות הדמיה מבוססת פלואורסצנציה קונבנציונלית בלבד. חשוב לציין שאות התהודה הפרהמגנטי של האלקטרון שזוהה משקף את החלק הפעיל לחמצון אדום בפולימר המלנין ולכן משמש כקריאה רגישה לחמצון אדום ולא כמדד ישיר לשפע הפיגמנט הכולל.
הביצועים של השיטה אומתו באמצעות זיהוי סלקטיבי של רדיקלים הקשורים למלנין בעוברים מסוג פיגמנטלי מסוג פראי, היעדר אות בביקורת אלבינו, שינויים התפתחותיים מובהקים סטטיסטית באות תהודה פרמגנטית אלקטרונית מנורמל בין שכפולים ביולוגיים עצמאיים, ותוצאות דומות שהושגו באמצעות מחזיקי דגימות חלופיים ודגימות קפואים.
על ידי שילוב ספקטרוסקופיית תהודה פרמגנטית של אלקטרונים בתחום X עם מודלים של גזנוגרפט של דגי זברה, פרוטוקול זה מספק פלטפורמה ניתנת להרחבה, אתית וניתנת להעברה למחקר פרה-קליני, מחקרי ביולוגיה של חמצון אדום והערכת התערבויות המווסתות מלנוגנזה.
מבוא
המטרה הכוללת של מחקר זה היא לפתח ולאמת שיטה אמינה ב-vivo לזיהוי וכימות רדיקלי מלנין במודל זנוגרפט של עוברי דגי זברה (Danio rerio) בשילוב עם ספקטרוסקופיית תהודה פרמגנטית אלקטרונית בתחום X (9.5 GHz). גישה זו שואפת לאפשר הערכה ישירה וכמותית של תהליכי רדוקס הקשורים למלנין במהלך התפתחות המלנומה ובתגובה להתערבויות פרמקולוגיות.
מלנין הוא קבוצה הטרוגנית של ביופולימרים האחראים לפיגמנטציה בעור, בשיער ובעיניים במגוון רחב של אורגניזמים. מבין צורותיו, לאאומלנין ולפיאומלנין תפקידים מובחנים בביולוגיה. אומלנין מציג תכונות נוגדי חמצון ופוטופרוטניות, בעוד שפיאומלנין יכול לקדם ייצור מיני חמצן תגובתי (ROS), במיוחד תחת חשיפה ל-UV 1,2,3. גם פעולות נוגדי חמצון וגם פרואוקסידנט קשורות להיווצרות רדיקלים של מלנין. ברמה המולקולרית, מלנין הוא פולימר הטרוגני פעיל לחמצן אדום המורכב מתת-יחידות אינדוליות וקינונים, שיכול להתקיים במספר מצבים פיזיקוכימיים, כולל קינון מחומצן לחלוטין, סמיקינון מופחת חלקית, והידרוקינון מצומצם לחלוטין 4,5,6. השפע היחסי של מיני רדיקלי סמיקינון הוא דינמי ותלויה בתנאים פיזיקוכימיים מקומיים, כולל זמינות חמצן, מיני חמצן ריאקטיביים (ROS), אינטראקציות בין יוני מתכת, pH, דרגת פולימריזציה ובשלת מלנוזום 7,8,9.
לכן, יש צורך בשיטות המאפשרות הערכה כמותית של ריכוזי הרדיקלים הללו להבנה טובה יותר של השינויים במצב החמצון הרדוקסי של המלנין. במלנומה, חוסר הוויסות של המלנוגנזה במלנוציטים תורם להתחלת המלנומה ולהתקדמותה. דיסרגולציה זו קשורה לעיתים קרובות לשינויים במצב החמצון האדום, התלויים בתנאי מיקרו-סביבה מקומיים. דבר זה הופך את פעילות החמצון האדום של המלנין לגורם חשוב בביולוגיה של הגידולים10. לכן, שיטות המאפשרות הערכה ישירה של רדיקלים של מלנין הן חיוניות להבנת פתוגנזה של מלנומה ותגובתן הטיפולית.
עוברי דגי זברה מהווים מודל חי חזק לחקר פיגמנטציה ומלנומה. עד 5 ימים לאחר ההפריה (120 שעות לאחר ההפריה, HPF), הם אינם מסווגים כבעלי חיים מוגנים לפי הנחיה 2010/63/EU, מה שמאפשר ניסויים בעלי תפוקה גבוהה ללא אישור אתי פורמלי. התפתחות מהירה, שקיפות אופטית ופרוטוקולים מבוססים הופכים את דג הזברה למתאים מאוד למחקרים טוקסיקולוגיים ופרמקולוגיים11,12. חשוב לציין כי דג זה חולק דמיון גנטי ופיזיולוגי משמעותי עם בני אדם, ומסלולים מרכזיים המעורבים במלנוגנזה נשמרים13. בעוד שדגי זברה מסוג בר מייצרים בעיקר אומלנין ומשמשים מודל לפיגמנטציה פיזיולוגית, מודלים של זנוגרפט — המבוססים על השתלת קווי תאי מלנומה המייצרים אומלנין ופאומלנין — מאפשרים חקירת התקדמות גידולים ביונקים ותגובות תרופתיות בסביבה מיקרו-רלוונטיתפיזיולוגית 14,15.
כיום, הדמיה מבוססת פלואורסצנציה היא השיטה הסטנדרטית במחקרי זנוגרפט של מלנומה של דג זברה. גישה זו מאפשרת ויזואליזציה בזמן אמת של צמיחת הגידול, נדידה ותגובת הטיפול באמצעות צבעים פלואורסצנטיים, כגון דיכלורודיהידרופלואורסצאין דיאצטט (DCFDA) או קווים טרנסגניים (Grx1-roGFP2, HyPer)16,17. עם זאת, טכניקות פלואורסצנציה מספקות בעיקר מידע מורפולוגי ומרחב ומוגבלות ביכולתן ללכוד תהליכים ביוכימיים ותהליכים הקשורים לחמצון אדום. בנוסף, הקריאות שלהן עשויות להיות מושפעות מהלבנת פוטו, דליפת צבע, הפרעות מתרכובות פלואורסצנטיות ושינויים פוטנציאליים בפיזיולוגיה של התאים הנגרמים על ידי תיוג. חשוב לציין ששיטות מבוססות פלואורסצנציה אינן מספקות מידע ישיר על רדיקלים של מלנין או על התנהגות החמצון הדינמי שלהם.
ספקטרוסקופיית תהודה פרמגנטית אלקטרונית מציעה גישה אנליטית ייחודית ועוצמתית, שכן היא מאפשרת זיהוי וכימות ישיר של מינים פרמגנטיים, כולל רדיקלים יציבים הקשורים למלנין. גם האומלנין וגם הפאומלנין מכילים חתיכות סמיקינון שמייצרות אותות תהודה פרמגנטיים אלקטרוניים אופייניים, והתרומה היחסית של אותות אלו נחקרה כסמן ביולוגי למצב הפיגמנטציה והתקדמות המלנומה18,19. חשוב לציין, מאחר שרק חלק הסמיקינון הפעיל ב-Redox תורם ישירות לאות המזוהה, ספקטרוסקופיית תהודה פרמגנטית אלקטרונית מספקת מידע משלים לבדיקות קונבנציונליות הקשורות למלנוגנזה, כגון כימות תכולת המלנין, פעילות טירוזינאז או ניתוח פיגמנטציה. בהתאם לכך, יש לפרש את עוצמת אות תהודה פרהמגנטית של אלקטרונים כקריאה רגישה לחמצון אדום של מצב פונקציונלי של מלנין, המושפעת מתנאים פיזיקוכיים מקומיים, ולא כמדד ישיר לשפע הפיגמנט הכולל.
בעוד שרוב מחקרי תהודה פרמגנטית אלקטרונים ב-vivo נערכו באמצעות מערכות L-band (סוג של ספקטרוסקופיית תהודה פרמגנטית אלקטרונית המשתמשת במיקרוגל בתדר נמוך (כ-1–2 GHz) לחקר מינים פרמגנטיים, במיוחד בדגימות גדולות שבהן נדרשת חדירת אות עמוקה יותר)20— תהודה פרמגנטית אלקטרונית בתחום X מספקת רזולוציה ספקטרלית גבוהה יותר ורגישות לדגימות בנפח קטן, מה שהופך אותו למתאים במיוחד לעוברי דגי זברה. יתרה מזאת, פיתוחים טכניים אחרונים, כולל מערכות גילוי הרמוניות מרובות, משפרים משמעותית את איכות האות ומאפשרים מדידות אמינות בדגימות ביולוגיות מאתגרות (קטנות ולחות יותר)21,22. גודל התהודה בפס X הוא הגודל המתאים לכמה עוברים של דגי זברה, אשר בשילוב עם רזולוציה גבוהה יותר מאשר במערכת L-band, מאפשר הפחתת מספר בעלי החיים בהם משתמשים. זה חשוב במיוחד בעבודה עם מודלים של xenograft.
למרות יתרונות אלו, יישום תהודה פרמגנטית אלקטרונית בתחום X על עוברי דגי זברה חיים ועל זנוגרפות מלנומה במודל זה נותר ברובו לא נחקר. מחקרים במבחנה באמצעות קווי תאי מלנומה, כגון B16F10, סיפקו תובנות חשובות לגבי תכונות רדיקלי המלנין; עם זאת, הם חסרים את ההקשר הפיזיולוגי המורכב של אורגניזם חי23,24. במיוחד, מיקרו-סביבת דג הזברה מציגה גורמים קריטיים — כגון גרדיאנטים של חמצן, אינטראקציות בין תאים לתא ופעילות מטבולית דינמית — שעשויים להשפיע משמעותית על התנהגות רדיקלי המלנין25,26. לכן, יש צורך ברור לפתח ולאמת מתודולוגיה in vivo שמאפשרת מדידה ישירה של רדיקלים של מלנין בתנאים פיזיולוגיים רלוונטיים.
במחקר זה אנו מציגים פרוטוקול מפורט ליישום ספקטרוסקופיית תהודה פרמגנטית אלקטרונית בתחום X על עוברי דגי זברה, כולל מודלים של xenograft המכילים קווי תאי מלנומה B16F10 ו-B16F1. שיטה זו מספקת גישה משלימה להדמיה מבוססת פלואורסצנציה על ידי מתן הערכה כמותית של תכולת רדיקלי המלנין, ובכך מספקת תובנות לדינמיקת החמצון האדום. על ידי שילוב מידע מבני ומרחב מטכניקות פלואורסצנציה עם תובנות ביוכימיות מתהודה פרהמגנטית אלקטרונית, אסטרטגיה משולבת זו מחזקת את הכוח האנליטי של מודלי דגי זברה למחקר פרה-קליני במלנומה. חשוב לציין שאות התהודה הפרמגנטי של האלקטרון שזוהה בפרוטוקול זה משקף את החלק הפעיל של פולימר המלנין-חמצון הפעיל. בהתאם לכך, יש לפרש את עוצמת האות כקריאה רגישה לחמצון אדום ולא כמדד ישיר לתכולת המלנין הכוללת, ולשקול אותה בשילוב עם תכולת הפיגמנט הכוללת כאינדיקציה לשינויים ב-Redox הקשורים למלנין. עקב גישת מדידת כל האורגניזם ומספר תאי המלנומה המוגבל שהוזרקו, האות שזוהה מייצג בעיקר שינויים רדיקליים גלובליים הקשורים למלנין ברמת כל עובר/זחל דג הזברה, ולא אות ספציפי למלנומה שמקורו בלעדית בהשתל הזנולוגי. הבחנה זו רלוונטית במיוחד במערכות ביולוגיות דינמיות, שבהן שינויים במצב חמצון המלנין עשויים להתרחש באופן עצמאי משינויים בכמות הפיגמנט הכוללת.
פרוטוקול
עוברים של דגי זברה (Danio rerio) שימשו במחקר זה עד 5 ימים לאחר ההפריה (120 hpf). בשלב ההתפתחותי הזה, עוברים אינם נחשבים לבעלי חיים מוגנים לפי הנחיה 2010/63/EU ולכן ניסויים אינם דורשים אישור רשמי מוועדת אתיקה. למרות זאת, כל העבודה בוצעה בהתאם לפרקטיקות מעבדה טובות ולהנחיות מוסדיות לטיפול ושימוש בדגי זברה.
1. הכנת תגובות ותחזוקה של קווי תאי מלנומה בעכבר B16F1 ו-B16F10
- הכנת מדיום שלם
- הוסף 50 מ"ל סרום בקר עוברי (FBS) ו-5.5 מ"ל תמיסת פניצילין-סטרפטומיצין ל-500 מ"ל של Modified Eagle Medium (DMEM) של Dulbecco.
- חממו את כל המדיום ל-37 מעלות צלזיוס לפני השימוש.
הערה: השתמש בתמיסות מחוממות מראש כדי למזער לחץ תרמי במהלך טיפול בתא.
- הפשרה והתחלת תרבית מתאים קפואים
- הפשיר במהירות את הבקבוקון הקפוא באמצעות תאים באמבט מים בטמפרטורה של 37°C (~1–2 דקות).
- חטא את החלק החיצוני של הבקבוקון עם 70% אתנול. בצע את כל השלבים הבאים בתנאים אספטיים.
- העבר את תליית התא לצינור חרוטי של 15 מ"ל המכיל 9 מ"ל מדיום שלם מחומם מראש. שמור אליקו קטן של המתלה המקורית לבדיקות מיקופלסמה.
- תאי צנטריפוגה בצינור הצנטריפוגה ב-200 × גרם למשך 5 דקות בטמפרטורת החדר.
- שאיפת הסופרנטנט כדי להסיר שארית דימתיל סולפוקסיד (DMSO; מהמדיום הקפואה).
- החזירו את כדור התא ל-10 מ"ל של מדיום טרי ומחומם מראש.
- העבר תאים לצלחת פטרי בגודל ⌀9 ס"מ וסובב בעדינות בתנועת שמונה כדי לפזר את התאים באופן שווה.
- דגרו תאים בטמפרטורה של 37°C, 5% CO₂ ולחות ≥95% במהלך הלילה.
- החליפו את מדיום הגידול במדיום טרי ומחומם מראש לאחר 16–24 שעות.
- ממשיכים בדגירה עד שהתאים מגיעים ל->80% מפגש מתאים. המשך לתת-תרבות (ראו שלב 1.3).
הערה: לחלופין לצלחות פטרי, ניתן להשתמש בכלי גידול סטריליים (למשל, בקבוקי T). אם מעדיפים צלחות או בקבוקים קטנים יותר, יש לפצל את התאים באופן פרופורציונלי כדי לשמור על אותו שטח פנים יחסי של תרבית.
- תת-תרבות של תאים
- הסר את מדיום התרבית מהשכבה המונולרית של התא. שמור אליקו קטן לבדיקות מיקופלסמה.
- הוסיפו 10 מ"ל של מלח מפוזר פוספט (PBS) לצלחת הגידול.
- תן ל-PBS לשבת על התאים בטמפרטורת החדר למשך 3–5 דקות כדי לאפשר הסרה מלאה של חלבוני הסרום.
- שאפו בעדינות את ה-PBS, תוך זהירות שלא לשחרר את התאים.
- הוסיפו 1 מ"ל של תגובת פירוק תאים ודגרו ב-37°C עד שהתאים מתעגלים ומתנתקים (לא עוברים 5 דקות בזמן דגירה).
- הוסף 1 מ"ל של מדיום מלא מחומם מראש כדי לעצור דיסוציאציה אנזימטית.
- הפיפט בעדינות את תליית התא למעלה ולמטה מספר פעמים כדי לקבל תלייה חד-תאית.
- העבר את התאים לצלחת פטרי חדשה או לבקבוק T המכיל מדיום שלם מחומם מראש ביחס מפוצל של 1:4 ל-1:10. סובב בעדינות בתנועת שמונה כדי לפזר את התאים באופן שווה.
- דגרו תאים בטמפרטורה של 37°C, 5% CO₂ ו-≥95% לחות.
הערה: השתמשו בתמיסות מחוממות מראש (37 מעלות צלזיוס) ובצעו את כל ההליכים בתנאים אספטיים בארון בטיחות ביולוגי מסוג Class II, תוך לבישת ציוד מגן אישי מתאים. תת-תרבית תאים כל 2–3 ימים או בנקודת חיבור של 80–90%. השתמש בתאים בעלי מעבר נמוך (
- שימור קירור (גידול) של תאים
- השתמש בתאים בריאים שגדלים באופן מעריכי (~70%–80% מתכופפים).
- אספו את התאים כפי שמתואר בשלבים 1.3.1–1.3.7 והעבירו את תליית התא לצינור קוני בנפח 15 מ"ל.
- צנטריפוגה את התאים ב-300 × גרם למשך 2 דקות.
- הסר את הסופרנטנט והחזיר את התאים למרחק שימור בהקפאה ב-1–5 × 10⁶ תאים למ"ל.
- השעיית תא Aliquot לקריוביאלים מסומנים (קו תא, מספר מעבר, תאריך).
- הקפיאו בקבוקים בלילה בטמפרטורה של מינוס 80°C באמצעות מיכל הקפאה בקצב מבוקר.
- כחלופה, השתמש בשיטת בידוד מקוננת: הכנס את הבקבוקונים למדף קלקר קטן המיועד לצינורות 1.5/2.0 מ"ל, אשר ממוקם בתוך קופסת פוליסטירן גדולה יותר.
הערה: תצורה דו-שכבתית זו נועדה לספק את הבופר התרמי הנדרש להשגת קצב קירור הדרגתי, שהוא קריטי להצלחת שימור קריופרטי.
הערה: חומרים קריוגניים חייבים להיות מטופלים עם כפפות מבודדות והגנה מפני הפנים. פעלו לפי הנחיות מוסדיות לטיפול בחנקן נוזלי ופסולת מסוכנת.
- כחלופה, השתמש בשיטת בידוד מקוננת: הכנס את הבקבוקונים למדף קלקר קטן המיועד לצינורות 1.5/2.0 מ"ל, אשר ממוקם בתוך קופסת פוליסטירן גדולה יותר.
- לאחר דגירה לילית בטמפרטורה של -80°C, העבר את הבקבוקים לחנקן נוזלי לאחסון ארוך טווח. ניתן לאחסן קריוביאלים בטמפרטורה של -80°C לאחסון קצר טווח.
- בדיקת מיקופלזמה
- לאסוף אליקו קטן של מדיום תרבית או תליית תא במהלך הפשרה, תת-תרבות או שימור קריופרטיב.
- הערכו זיהום מיקופלסמה באמצעות ערכת זיהוי מיקופלזמה מבוססת PCR או אנזימטית מאומתת בהתאם להוראות היצרן.
- השתמש בתרביות שליליות למיקופלזמה לניסויים או לבנקאות קווי תאים.
- לרשום תוצאות ולזרוק או לבודד תרביות מזוהמות עד לניקוי.
הערה: יש לבדוק באופן קבוע זיהום במיקופלסמה.
2. השתלת תאי סרטן לזחלי דגי זברה
- הכנת תאי סרטן להשתלה
- לגדל תאים ל-~80% קונפילציה.
- קצור את התאים כפי שמתואר בשלבים 1.3.1–1.3.7.
- העבר את תליית התא לצינור מיקרוצנטריפוגה בקוטר 2 מ"ל.
- צנטריפוגה את התאים ב-300 × גרם למשך 2 דקות בטמפרטורת החדר.
- הסר את הסופרנטנט ושוטף את כדור התא ב-1 מ"ל של PBS סטרילי.
- חזור על שלב 2.1.4–2.1.5 והחזיר את התאים ב-PBS שנותרו. השעיה צפופה יותר תיתן פחות סדימנציה.
- הפיפט את המתלה למעלה ולמטה בעדינות עד שמתקבל תלייה חד-תאית הומוגנית.
הערה: שימוש בקצה פיפטה בנפח 200 מיקרוליטר שהורטבו מראש (מופריימר) עם תמיסת פוליווינילפירולידון (PVP) של 45%, שכן היא מסייעת במניעת שקיעת תאים בתוך מחט המיקרו-הזריקה. - השאירו את ה-Cell Suspension על הקרח עד ההזרקה.
הערה: אם מתרחש התגבשות תאים, העבירו את תליית התא דרך מסננת תאים בגודל 35–40 מיקרון ו/או טפלו בתאים ב-0.01–0.05 מ"ג/מ"ל DNase I.
- ייצור ביצי דג זברה
- בערב שלפני איסוף הביצים הצפוי, הניחו את דגי הזברה הבוגרים במיכלי רבייה המכילים מים מהמערכת (שהוכנו להטלה).
- להשאיר את המיכלים בחושך מוחלט במהלך הלילה; זה מבטיח שההופעה תתבצע בבוקר למחרת, כאשר האורות נדליקים.
- הדגים יבוצו לאחר האור ביום הבא. אספו את הביצים על ידי שפיכת מי האקווריום דרך מסננת התה.
- שטוף את הביצים היטב עם מדיום E3 (5 מ"מ NaCl, 0.17 מ"מ KCl, 0.33 מ"מ CaCl2, 0.33 מ"מ MgSO4).
- העבר ביצים מופריות לצלחות פטרי בגודל 9 ס"מ המכילות 20–25 מ"ל של מדיום E3. לא שים יותר מ-50 עוברים בכל מנה.
- דגרו את העוברים בטמפרטורה של 28 מעלות צלזיוס עד לשימוש נוסף.
הערה: הקפד לשמור על ביצים לחות כל הזמן.
- הכנת עוברים לדג זברה
- הסרת הכוריון ידנית מהעוברים בעוצמה של כ-36 כ"ס כוח.
- השתמשו בשני זוגות מלקחיים אולטרה-דקים של תכשיטים מס' 5. עם זוג אחד, לחץ בחוזקה אך בעדינות את הכוריון כדי לייצב את הביצה. השתמש בזוג המלקחיים השני כדי לתפוס את הכוריון ליד הזוג הראשון.
- משכו בעדינות את המלקחיים לכיוונים מנוגדים כדי ליצור קרע קטן. הרחיב בזהירות את הפתח עד שהעובר מחליק החוצה.
- הרדמו זחלים מפורקים עם תמיסת טריקאין טרייה לפי פרוטוקולי דגי זברה27.
הערה: עוברים ללא כוריון הם שבירים, דביקים, ויש למנוע מהם חשיפה לאוויר. השתמש בפיפטות זכוכית וצלחות פטרי מצופות אגרוז בזמן עבודה עם דג זברה <3 dpf.
- הסרת הכוריון ידנית מהעוברים בעוצמה של כ-36 כ"ס כוח.
- הכינו מחטי מיקרו-הזרקה
- משוך נימי זכוכית ללא פילמנט באמצעות מושך עם פרמטרים שנקבעו לפי הנחיות היצרן.
- באמצעות מלקחיים דקים, שברו את קצה המחט בשני שלבים: ראשית, עשו שבר קטן בקצה המחט הדק. לאחר מכן, בצע שבירה שנייה בדיוק במקום שבו התאים נתקעים. זה יוצר פתח אופטימלי שהוא בדיוק מספיק גדול כדי שהתאים יוכלו לעבור, תוך שמירה על קטן ככל האפשר.
- מלא את המחט עם מתליית התא באמצעות מיקרוליידר ארוך - טיפ למילוי מיקרו-נימי זכוכית. הימנעו מהחדרת בועות אוויר.
- השתמש בצפיפות התא הגבוהה ביותר האפשרית (ריכוז מקסימלי) עבור המתלה; המינון הספציפי של התא נשלט באמצעות הגדרות המזרק.
- העמיס את המחט לעיתים קרובות עם אליקווטים קטנים, מה שמגביל את עמוד המתלים בתוך המחט לגובה מקסימלי של 2 מ"מ. דבר זה ממזער את שקיעת התאים בתוך המחט, ומבטיח חלוקה אחידה יותר ואספקה עקבית במהלך ההזרקות.
- התקן את המחט הטעונה על מחזיק של מכשיר המיקרו-הזרקה.
- כוונן את לחץ ההזרקה ומשך הדופק כדי לספק את מספר התאים הרצוי בכל הזרקה (הנפח הכולל של תליית התא המוזרקת לא צריך לעלות על גודל עין עובר דג הזברה בזמן ההזרקה).
הערה: דוגמאות מפורטות לשיטת מיקרוהזרקה של גזנוגרפט בדגי זברה תוארו בעבר על ידי מחברים אחרים28.
- הליך מיקרו-הזרקה
- הזריק את תליית התא לשק החלמון או למחזור הפעולה לפי העיצוב הניסוי.
- למסור יותר מ-1000 תאים לכל עובר בתנאי הזרקה מכוילים.
הערה: כללו עוברים שהוזרקו במזל מלח (PBS) כביקורת שלילית.
- טיפול לאחר הזרקה
- שמרו על העובר/הזחלים שהוזרקו בטמפרטורה של 28-32 מעלות צלזיוס
- עוקבים מדי יום אחרי הישרדות הזחלים והתקדמותם ההתפתחותית תחת כוונת ניתוח.
- להעריך את התרבות והגירה של תאי הגידול בנקודות זמן ניסיוניות נבחרות.
- המשך במדידת רזוננס אלקטרוני פרמגנטי (EPR) כפי שמתואר בסעיף 3.1 או שמור דגימה כפי שמתואר בסעיף 2.7
הערה: יש להשליך זחלים עם טראומה מהזרקה או הזרקה לא נכונה. פעלו לפי כל הנחיות הבטיחות הביולוגית והטיפול בבעלי חיים במוסדות. לטפל בפסולת טריקאין וביולוגית בהתאם לפרוטוקולי בטיחות. להשליך חומרים מסוכנים לפי התקנות.
- איסוף דגימות להקפאה
- הורד את הזחלים על ידי הטבילה בתמיסת טריקאין מקוררת למשך לפחות 3 דקות.
- העבר קבוצות של 10 זחלים לצינורות מיקרוצנטריפוגות בנפח 1.5 מ"ל. הסר את עודף המדיום מכל צינור.
- אחסן דגימות בטמפרטורה של -20°C עד ניתוח תהודה פרמגנטית אלקטרונית.
3. זיהוי רדיקלי מלנין באמצעות ספקטרוסקופיית תהודה פרמגנטית אלקטרונית
- זיהוי רדיקלי מלנין בזחלי דגי זברה ב-vivo
- הפעל את ספקטרומטר התהודה הפרמגנטי של אלקטרונים בתחום X ואפשר למערכת לייצב בהתאם להוראות היצרן.
- העבר 20–30 זחלי דגי זברה (3–5 ימים לאחר ההפריה, DPF) לצינור מיקרוצנטריפוגה בנפח 1.5 מ"ל.
- מלאו את הנימים השטוחים של זחלי דגי הזברה ב-100 מיקרוליטר של מדיום E3.
- אטום קצה אחד של הנימים בכיסוי פלסטיק וודא שעמוד הנוזל נשאר מוגבל לתא השטוח.
- העבר מספר זחלים יחד עם נפח קטן של מדיום E3 לנימי המטוקריט של 100 מיקרוליטר.
- מניחים בעדינות זחלים מנימי המטוקריט בחלק העליון של החלק השטוח.
הערה: הקפד לשמור על המשכיות הפתרון. לא אמורות להיות בועות אוויר בחלק השטוח או קרוב לחלק העליון של החלק השטוח. - הסר נוזלים עודפים מהחלק הצינורי החיצוני של הנימים תוך שמירה על מגע נוזלי רציף בתוך התא השטוח.
- שלבים חוזרים 3.1.5–3.1.7 עד ש-20–30 זחלים נטענים לתוך הנימים השטוחים.
- הסר נוזל שנותר מהחלקים הצינוריים של הנימים.
- הכנס את הקפילריה לספקטרומטר תהודה פרמגנטי אלקטרוני וממקם את הדגימה במרכז התהודה.
- הגדר את פרמטרי הרכישה בתוכנת הספקטרומטר כך: שדה מרכזי = 335 mT; רוחב סוויפ = 10 מ"ט; משרעת מודולציה = 500 מיקרוטון; הספק מיקרוגל = 1.6 mW; מספר הסריקות = 32; זמן סוויפ = 11 שניות; קבוע הזמן = 0.
- לרכוש את ספקטרום התהודה הפרמגנטית של האלקטרונים.
- הסר את הנימים מהרזונטור ושחרר את הזחלים למדיום E3 טרי בצלחת פטרי.
הערה: הימנעו מהכנסת בועות אוויר במהלך טעינת הדגימה, שכן אי-רציפויות בעמודת הנוזל עלולות להפחית את שחזור האות. אם אין זיהוי רב-הרמוני, הפחיתו את אמפליטודת המודולציה ואופטימיזציה את פרמטרי הרכישה כדי למקסם את עוצמת האות ללא עיוות ספקטרלי.
- זיהוי רדיקלי מלנין בזחלי דגי זברה קפואים
- הפשיר דגימה קפואה המכילה 10 זחלי דגי זברה שהושמתו בטמפרטורת החדר למשך 5–10 דקות.
- הוסיפו 100 מיקרוליטר מדיום E3 לדגימה המופשרת.
- העבר את הזחלים יחד עם המדיום לנימי המטוקריט של 100 מיקרוליטר.
- הסר נוזלים עודפים מהנימי עד שהדגימה תופסת רק את נפח התהודה הפעיל (כ-1 ס"מ באורך).
- אטום את הנימים עם תרכובת איטום.
- הכנס את הקפילריה לספקטרומטר תהודה פרמגנטי אלקטרוני וממקם את הדגימה במרכז התהודה.
- הגדר את פרמטרי הרכישה בתוכנת הספקטרומטר כך: שדה מרכזי = 335 mT; רוחב סוויפ = 10 מ"ט; משרעת מודולציה = 500 מיקרוטון; הספק מיקרוגל = 1.6 mW; מספר הסריקות = 32; זמן סוויפ = 11 שניות; קבוע הזמן = 0.
- לרכוש ולהציל את ספקטרום התהודה הפרמגנטית של האלקטרון.
הערה: ודא שהקצה העליון של הדגימה נשאר מתחת לקצה העליון של התהודה כדי למנוע עיוות אות. אם אין זיהוי הרמוני זמין, יש להפחית את משרעת המודולציה ולייעל את עוצמת המיקרוגל כדי למקסם את עוצמת האות ללא עיוות ספקטרלי.
- הפקת נתוני תהודה פרמגנטית אלקטרונית מתוכנת אנלייזרים מולטיהרמוניים ועיבוד לאחר הספקטרום
- פתח את ספקטרום התהודה הפרהמגנטית של האלקטרון המוקלט בתוכנת הניתוח הרמוני.
- הפעל עיבוד אות דו-ערוצי על ידי בחירת 'השתמש בשני ערוצים'.
- הגדר את מספר ההרמוניות המעובדות ל-30.
- כוונו את פרמטר הפאזה/דגה של המיקרוגל עד שמתקבלים רכיבי ספיגה ופיזור סימטריים.
- כוונן את פרמטר הפאזה/הדג של המודולציה עד שערוץ 1 מציג אות בליעה טהור וערוץ 2 מציג אות פיזור טהור.
- כוונן את פרמטר אמפליטודת המודולציה/G עד שמתקבל קו ספקטרום צר ובלתי מעוות.
- הגדר את פרמטר Low pass/Hz כך שיפחית רעש בתדר גבוה תוך שמירה על צורת הקו הספקטרלי.
- בחר בלשונית דיכוי רעש ולחץ על הפעלת דיכוי רעש. כוונן את מקדם ההחלקה ופרמטרי שיפור הקו הצר עד שיחס האות לרעש משתפר ללא עיוות נראה לקו הספקטרלי.
- בחר בלשונית Artifacts והפעל תיקון Outlier ותיקון רוחב פס.
- שמור ספקטרום בפורמט המשמש את תוכנת ניתוח הנתונים לניתוח נוסף.
- חשב את עוצמת האות המשולבת הכפולה באמצעות אינטגרציה נומרית בתוכנות ניתוח נתונים מתאימות.
הערה: בעבודה עם רזונטורים באיכות Q גבוהה, תיקון רוחב הפס משפר את השחזור של רכיבים הרמוניים גבוהים. שחזור רב-הרמוני מאפשר שחזור ספקטרום לא מעוותים מנתונים גולמיים מודולציה יתר ומשפר את יחס האות לרעש בדגימות ביולוגיות בעוצמה נמוכה.
תוצאות
סקירה סכמטית של זרימת העבודה הניסיונית מוצגת באיור 1. עוברי דגי זברה נאספו, הושתלו בתאי מלנומה B16F10, דוגרו בתנאים מבוקרים, ונעקבו במיקרוסקופיה בשדה בהיר או פלואורסצנציה לפני ניתוח תהודה פרמגנטית אלקטרונים בתחום X. עוברים חיים הועמסו לאחר מכן לתוך נימים/מחזיק דגימה שטוח למדידות תהודה פרמגנטית של אלקטרון שלם, מה שאפשר זיהוי לא פולשני של אותות רדיקליים הקשורים למלנין. לאחר רכישת תהודה פרמגנטית אלקטרונית, שוחררו עוברים למדיום E3 טרי, מה שאפשר מדידות אורך באותם דגימות ביולוגיות.
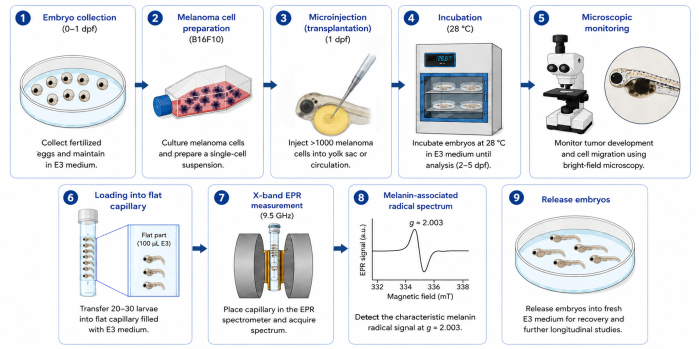
איור 1: סקירה גרפית של זרימת העבודה הניסיונית במעקב אינ-ויבו אחר רדיקלים הקשורים למלנין בזנוגרפטים של מלנומה של דגי זברה באמצעות ספקטרוסקופיית EPR (תהודה פרמגנטית אלקטרונית בתחום X). עוברי דגי זברה נאספים, מושתלים בתאי מלנומה, מודגרים ומפוטרים במיקרוסקופ לפני שהם נטענים לנימים שטוחים מותאמים למדידות EPR של כל האורגניזם. לאחר גילוי אות הרדיקלי האופייני למלנין (g ≈ 2.003), משתחררים הזחלים למדידות מעקב לאורך זמן. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
כדי לאמת את הספציפיות של השיטה, בוצעו מדידות על עוברים מסוג בר (WT) ודגי זברה אלבינו. עוברי WT מתחילים לפתח פיגמנטציה נראית לעין בכ-27 hpf. בהתאם לכך, ספקטרום תהודה פרמגנטית אלקטרונים הנרכש מעוברי WT מציגים אות קווי יחיד אופייני שמרכזו ב-g ≈ 2.003, בהתאם לרדיקלים סמיקונונים שמקורם באאומלנין (למשל, DHI/DHICA). לעומת זאת, עוברים אלבינו, שחסרים סינתזת מלנין פונקציונלית, אינם מראים אות תהודה פרמגנטי אלקטרוני ניתן לזיהוי באותו אזור ספקטרלי אפילו 5 ימים לאחר ההפריה (DPF). דבר זה מאשר שהאות הנצפה נובע במיוחד מרדיקלים של מלנין ומייצג סלקטיביות של שיטת אימות בקרה שלילית (איור 2).
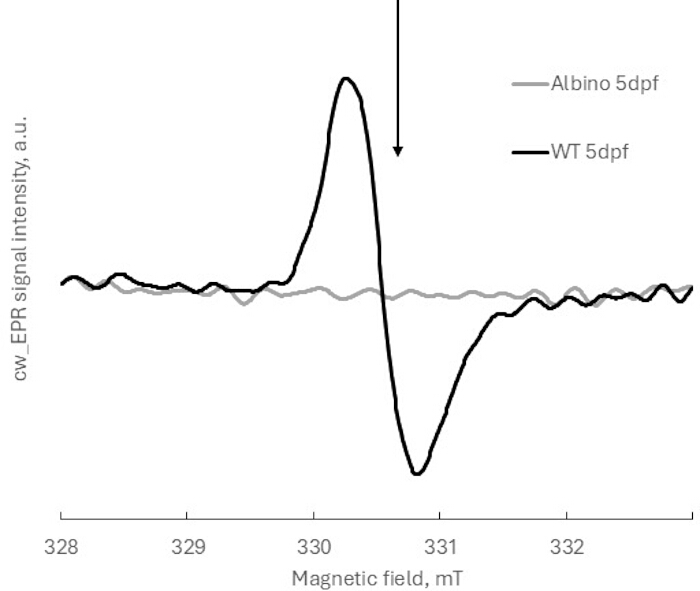
איור 2: ספקטרום תהודה פרמגנטית של אלקטרונים בתחום X של עוברים מסוג פראי (WT) ואלבינו של דגי זברה ב-5dpf. החץ מציין את מיקום התהודה (g ≈ 2.003) של אות הרדיקלי הקשור למלנין מעוברי דגי זברה WT ב-5dpf. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
השיטה מאפשרת ניטור כמותי של היווצרות רדיקלי המלנין במהלך ההתפתחות. ככל שהפיגמנטציה מתקדמת, נצפית עלייה ברורה בעוצמת אות התהודה הפרמגנטית של האלקטרונים. השוואה בין עוברי WT מ-2 dpf ל-5 dpf מראה עלייה משמעותית באות התהודה הפרהמגנטי האלקטרוני המשולב הכפול המנורמל לכל עובר. הנורמליזציה בוצעה על ידי חלוקת עוצמות אות התהודה הפרמגנטית של האלקטרונים הגולמיים במספר העוברים בדגימה לפני חישוב האינטגרל הכפול (איור 3A).
ניתוח סטטיסטי בוצע באמצעות מבחן קרוסקל–ווליס ואחריו מבחן ההשוואות המרובות של דאן. ניתוח על שישה שכפולים ביולוגיים עצמאיים (כל אחד כולל 7–10 עוברים) הראה הבדלים מובהקים סטטיסטית באות התהודה הפרהמגנטית המנורמל בין שלבי ההתפתחות (p < 0.05), מה שמאשר את רגישות השיטה.
האינטגרל הכפול של ספקטרום התהודה הפרמגנטית של האלקטרונים פרופורציונלי למספר הספינים הלא-מזווגים של האלקטרונים. לכן, העלייה מצביעה על עלייה באוכלוסיית הרדיקלים הקשורים למלנין במהלך ההתפתחות. חשוב לציין כי עלייה זו ככל הנראה משקפת שינויים בשיווי המשקל של החמצון המלנין הקשורים למלנוגנזה מתקדמת, ולא רק הצטברות פיגמנט.
השחזוריות של הפרוטוקול הוערכה עוד יותר על ידי השוואת ספקטרום תהודה פרמגנטית של אלקטרונים מייצגים שנאספו מדגימות המכילות מספר שונה של עוברים (7 לעומת 10) באותו שלב התפתחותי (5 dpf). כצפוי, הספקטרום הגולמי הראה הבדלים במשרעת האות הפרופורציונלית לגודל המדגם (איור 3B). לאחר הנרמול של כל ספקטרום למספר העוברים בכל דגימה, הספקטרום חפף כמעט לחלוטין (איור 3C), והשונות בין האצווה נותרה מתחת ל-10%. תוצאות אלו מדגישות את חשיבות הנורמליזציה לכל עובר ומאשרות את עמידות השיטה למחקרים השוואתיים.
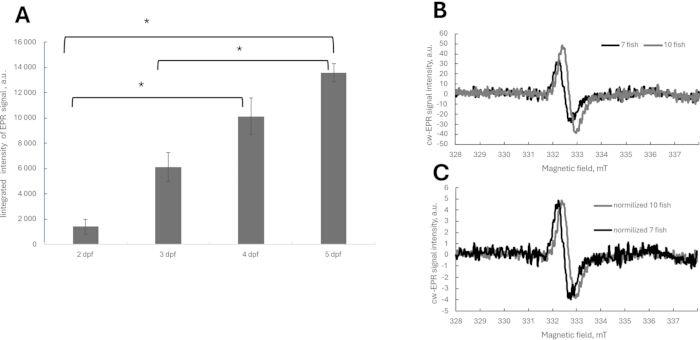
איור 3: ניטור כמותי של דינמיקת רדיקליים התפתחותית הקשורה למלנין ונורמליזציה של ספקטרום תהודה פרמגנטית אלקטרונית. (A) אות תהודה פרמגנטי אלקטרונים אינטגרטיבי בפס X מתקבל מעוברי דגי זברה מסוג בר (WT) בימים 2, 3, 4 ו-5 ימים לאחר ההפריה (dpf). עוצמת האות נורמלה למספר העוברים בכל דגימה. הנתונים מייצגים ממוצע ± SD של שישה שכפולים ביולוגיים עצמאיים, שכל אחד מהם כולל 7–10 עוברים. הבדלים מובהקים סטטיסטית - *p < 0.05. (B) ספקטרום תהודה פרמגנטית אלקטרונים גולמי מייצגת שנאספה מעוברים 5 dpf WT באמצעות דגימות המכילות 7 ו-10 עוברים. משרעת האות עולה באופן פרופורציונלי עם מספר העוברים בדגימה. (C) אותם ספקטרום תהודה פרמגנטית אלקטרונים המוצגים בפאנל B לאחר הנרמליזציה, כלומר, עוצמות הספקטרום הגולמיות מחולקות במספר העוברים בקפילריה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
כדי להעריך האם הפרוטוקול תלוי בנימי השטוח המותאם האישי למדידות דגי זברה בחיים , בוצע זיהוי רדיקלי קשור למלנין באמצעות הנימים השטוחים המותאמים אישית וניתוח אקס ויבו סטנדרטי זמין מסחרית. ספקטרום תהודה פרמגנטי של אלקטרונים ייצוגיים שנרכשו באמצעות שני מחזיקי הדגימות הראו צורת קו ומיקום תהודה דומים מאוד (איור 4A), מה שמעיד כי זיהוי אמין של רדיקלים הקשורים למלנין אינו מוגבל לעיצוב הנימים המותאם אישית. האותות מהנימים השטוחים, לאחר הנורמליזציה לעובר, היו נמוכים פי 2 מאלו שחושבו מחדש מהנימים הסטנדרטיים.
כדי להעריך עוד את גמישות טיפול הדגימה, נמדדו עוברי דגי זברה מיד לאחר האיסוף ואחרי ההקפאה, ואחריהם ניתוח ex vivo באמצעות נימים סטנדרטיים. לא נצפו הבדלים מובהקים סטטיסטית בין דגימות טריות ומוקפאות בשישה שכפולים ביולוגיים עצמאיים (איור 4B). תוצאות אלו מראות כי ניתן להתאים את הפרוטוקול למחזיקי דגימות תהודה פרמגנטיות אלקטרונים הזמינים באופן נפוץ ותומך בניתוח אקס ויבו מאוחר, מה שמגביר משמעותית את הנגישות, הגמישות והשחזור של השיטה במעבדות עם ספקטרומטרים שונים של תהודה פרמגנטית אלקטרונית.
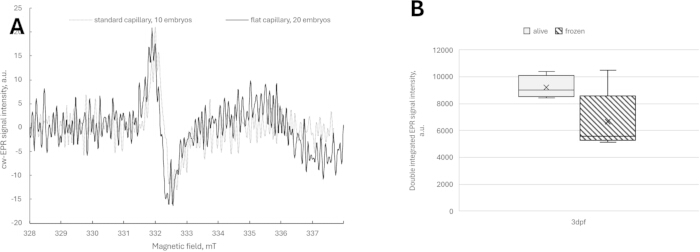
איור 4: תאימות הפרוטוקול. (A) ספקטרום תהודה פרמגנטית אלקטרונים גולמיים שנמדדו בנימים סטנדרטיים ושטוחים של דג זברה WT 2dpf. (ב) השוואה בין אותם שכפולים ביולוגיים (3 dpf זברה WT) שנמדדו חיים ומוקפאים בנימים סטנדרטיים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
כדי לקבוע האם אות התהודה הפרמגנטית של האלקטרון ניתן לייחס ישירות לרדיקלים שמקורם במלנין, השתמשו בעוברי דגי זברה אלבינו כרקע ללא מלנין והוזרקו לתאי מלנומה B16F10. מדידות תהודה פרמגנטית אלקטרונית בוצעו 4 ימים לאחר ההפריה (DPF) באותם תנאי רכישה המשמשים לעוברים מסוג בר. כצפוי, עוברים אלבינו שלא הוזרקו לא הראו אות תהודה פרמגנטי אלקטרוני ניתן לזיהוי באזור הספקטרום הספציפי למלנין. חשוב לציין שלא נצפה אות תהודה פרמגנטית אלקטרון המזוהה עם מלנין בעוברים אלבינו עם תאי B16F10 שהוזרקו (איור 5A), למרות שהשתלה מוצלחת של תאים אושרה במיקרוסקופיה מוארת (איור 5B).
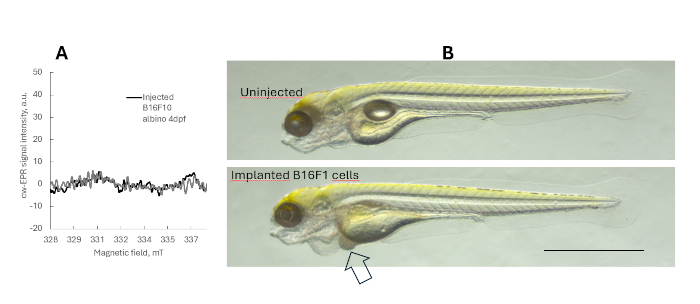
איור 5: הערכת גילוי רדיקלי מלנין שמקורם במלנומה בגזנוגרפטים של דגי זברה אלבינו B16F10. (A) אות תהודה פרמגנטית אלקטרונים הקשור למלנין במדידות זנוגרפט 4df אלבינו ואלבינו B16F10 שנמדדו באמצעות ספקטרומטר תהודה פרמגנטי אלקטרוני בתחום X. נעשה שימוש בשלושה שכפולים ביולוגיים של 10 עוברים כל אחד. (B) תמונת שדה בהיר של 4 dpf אלבינו וגזנוגרפט אלבינו עם B16F10 שלושה ימים לאחר השתלת תאי הסרטן. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
תוצאות אלו מצביעות על כך שבתנאים ניסיוניים נוכחיים, מספר תאי המלנומה המוזרקים נמוך מסף הגילוי הישיר של תהודה פרמגנטית של אלקטרונים בתחום X. לכן, האות הקשור למלנין שזוהה במדידות אורגניזם שלם משקף בעיקר שינויים גלובליים במצב החמצון המלנין של עובר/זחל דג הזברה, ולא אות ספציפי למלנומה שמקורו בלעדית בהשתלת הזנו.
בניסויי זנוגרפט, יעילות ההשתלה והצמיחה של תאי מלנומה הייתה תלויה מאוד באתר ההזרקה. הזרקה למחזור הדם (זרם הדם) הביאה להתפתחות גידולים עקבית יותר ואפשרה זיהוי אמין של אותות תהודה פרמגנטיים אלקטרוניים הקשורים לתאי מלנומה. לעומת זאת, הזרקה לשק החלמון גרמה לפגיעה בהתפתחות העובר ולצמיחה לקויה, מה שהוביל לאותות חלשים או לא עקביים. לכן, מומלץ לבצע זרם דם לקבלת תוצאות חזקות וניתנות לפענוח (איור 6).
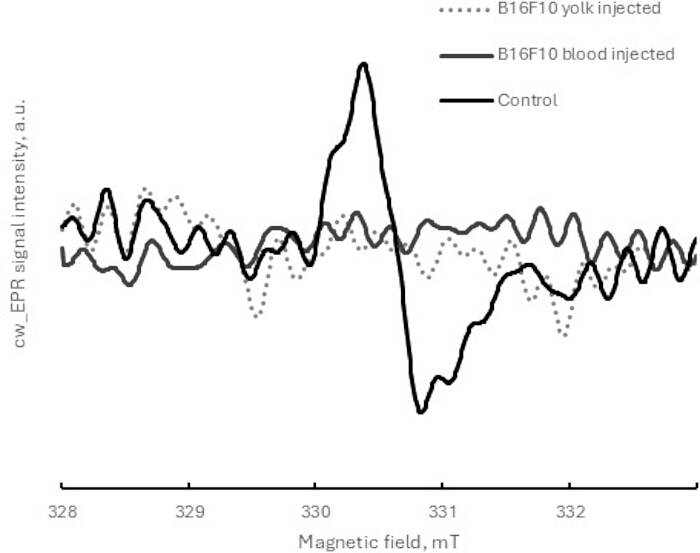
איור 6: השפעת אתר הזרקת תאי המלנומה על התפתחות עובר דג זברה 2 dpf והתפתחות זנוגרפט שנמדדה באמצעות תהודה פרמגנטית אלקטרונית בתחום X. ספקטרום תהודה פרמגנטית של אלקטרונים מייצגים מעוברי דגי זברה שהוזרקו בתאי מלנומה B16F10 לשק החלמון או למחזור הדם. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
כדי להדגים עוד יותר את היישום של השיטה במודלים של מלנומה, השווינו את אות התהודה הפראמגנטית של האלקטרון שהתקבל מעוברי דגי זברה מסוג בר (WT) ועוברי WT שהוזרקו לתאי מלנומה B16F10 בנקודות זמן התפתחות שונות.
בעוברי WT, אות התהודה הפרמגנטית של האלקטרון גדל בהדרגה עם הזמן, ומשקף את ההצטברות הטבעית של אומלנין במהלך ההתפתחות. לעומת זאת, עוברים הנושאים זנוגרפטים B16F10 הציגו שינוי בדינמיקת אותות, עם אות תהודה פרמגנטי אלקטרוני מותאם לעומת WT בנקודות זמן מתאימות (איור 7). הבדלים אלו ככל הנראה משקפים מודולציה שנגרמה על ידי גידול של מלנוגנזה של מארח ותנאי רדוקס מערכתית, ולא זיהוי ישיר של רדיקלים ממלנין שמקורם במלנומה בלבד. מכיוון שתאי B16F10 מייצרים בעיקר אומלנין, לא זוהה אות פאומלנין.
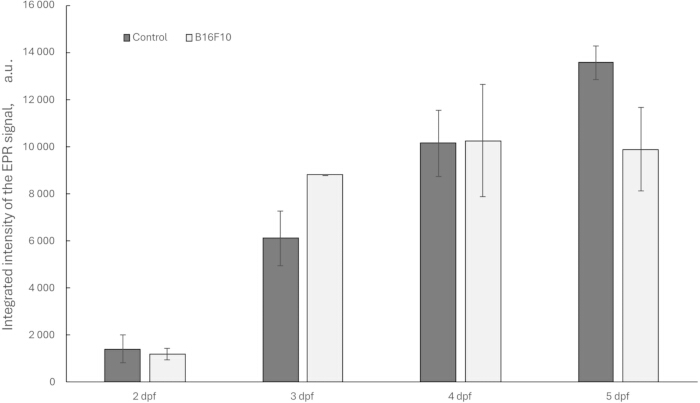
איור 7: השוואה מייצגת של דינמיקת אות EPR של אורגניזם שלם בעוברי דגי זברה הנושאים WT ו-WT B16F10 בביקורת. אות תהודה פרמגנטית אלקטרונית אינטגרטיבית ב-X שהתקבל מעוברי דגי זברה מסוג WT ו-WT B16F10 בשליטה ב-2, 3, 4 ו-5 ימים לאחר ההפריה (DPF). עוצמת האות נורמלה למספר העוברים בכל דגימה. הנתונים מייצגים ממוצע SD ± של שישה שכפולים ביולוגיים עצמאיים (לבקרה) ושלושה עבור זנוגרפטים של B16F10, שכל אחד מהם כולל 7–10 עוברים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
בסך הכול, היישום המוצלח של פרוטוקול זה מתבטא ב: (i) זיהוי אות תהודה פרמגנטי אלקטרוני חד-קו ב-g ≈ 2 בעוברים פיגמנטליים, (ii) היעדר אות בבקרות אלבינו, (iii) עלייה בעוצמת האות בשלב ההתפתחות, ו-(iv) שחזוריות בין שכפולים ביולוגיים לאחר הנרמליזציה.
דיון
מחקר זה מציג פרוטוקול עמיד ורגיש לזיהוי רדיקלים הקשורים למלנין בעוברי דגי זברה באמצעות ספקטרוסקופיית תהודה פרמגנטית אלקטרונית בתחום X. השיטה מאפשרת ניטור לא פולשני וללא תוויות של שינויים רדוקסיביים הקשורים למלנין במהלך מלנוגנזה פיזיולוגית, התפתחות זנוגרפט מלנומה והתערבות פרמקולוגית. על ידי שילוב הרגישות הגבוהה של ספקטרוסקופיית תהודה פרמגנטית אלקטרונית בתחום X עם פלטפורמת הזנוגרפט של דג זברה, גישה זו מרחיבה את היכולות האנליטיות של מודלים מודרניים של מלנומה של דגי זברה מעבר להדמיה מורפולוגית קונבנציונלית אל אפיון ביוכימי ישיר של מיני מלנין פעילים ב-Redox. בניגוד להדמיה מבוססת פלואורסצנציה, שמספקת בעיקר מידע מבני ומרחב, ספקטרוסקופיית תהודה פרהמגנטית אלקטרונית מזהה ישירות רדיקלים פרמגנטיים יציבים של סמיקינון, ומספקת תובנות פונקציונליות משלימות לביולוגיית חמצון רדוקסי של מלנין.
תהליך העבודה המוצג רלוונטי באופן רחב במחקר פיגמנטציה ומלנומה. יישומים פוטנציאליים כוללים הערכת טיפולים נגד מלנומה, חקר שינויים באיזון החמצון הרדוקסי שנגרמו על ידי תרופות, הערכת תרכובות מווסתות מלנוגנזה כגון חומרי הסרת פיגמנטציה או תגובת UV, וניתוח אינטראקציות בין גידול למארח ב-vivo. יתרה מזאת, שילוב עם הדמיית פלואורסצנציה ובדיקות פנוטיפיות אחרות עשוי לספק פלטפורמה רב-מודלית המשלבת מידע מרחבי, מורפולוגי וביוכימי, ובכך לשפר את הערך החיזוי של מודלי דגי זברה במחקר פרה-קליני ובפיתוח טיפולי.
מספר פרמטרים ניסיוניים הם קריטיים להשגת תוצאות אמינות. בניסויי זנוגרפט, הזרקה למחזור הדם סיפקה השתלה עקבית יותר ומדידות תהודה פרמגנטיות אלקטרוניות שניתנות לשחזור מאשר הזרקת שק חלמון, מה שמתאים למחקרים קודמים29,30. בחירת טמפרטורת הדגירה משחקת תפקיד חשוב. בעוד שזנוגרפות דגי זברה עשויות להישמר בדרך כלל בטמפרטורה של 32 מעלות צלזיוס כדי להעדיף קינטיקה של תאי יונקים31, קווי המלנומה B16F10 של העכברים ששימשו במחקר זה נראים אגרסיביים מספיק כדי להראות יכולות רבייה והגירה חזקות ב-28 מעלות צלזיוס. מכיוון שסביבה של 32 מעלות צלזיוס עלולה להאיץ משמעותית את התפתחות דגי הזברה — שעשויה להוביל להתנהגות אכילה עצמאית לפני היום החמישי לאחר ההפריה — שמירה על הזחלים בטמפרטורה של 28 מעלות צלזיוס תבטיח שהאורגניזמים יישארו בשלב ההתפתחותהלא מוגן 32. כתוצאה מכך, בחירת טמפרטורה זו עשויה לאפשר תצפית מוצלחת על התקדמות הגידול והגרורות תוך שמירה על עמידה בתקנות רווחת בעלי החיים שמגנות על הזחלים כאשר הם מגיעים לשלב ההאכלה העצמאי. נקודה קריטית נוספת היא שנירמול מדויק למספר העוברים ושלב התפתחותי עקבי הם חיוניים למזעור שונות ביולוגית. אותות חלשים או לא עקביים עשויים לנבוע מפיגמנטציה לא מספקת, עומס גידול נמוך, מיקום דגימה לא אופטימלי בתוך התהודה, או מילוי קפילרי לא שלם. במקרים כאלה, הגדלת מספר העוברים לכל דגימה, אופטימיזציה של יעילות ההשתלה ואימות מיקום הדגימה בנפח התהודה הפעילה עשויים לשפר את זיהוי האותות. נדרש מספר גבוה יותר של עוברים למדידות in vivo בקפילריה שטוחה בשל אובדן דיאלקטרי ופקטור מילוי מופחת הקשור למדידות אורגניזם שלם בדגימות ביולוגיות מימיות. עם זאת, שיטה זו יכלה לשמש עם נימים רגילים ex vivo. ממצאים אלו מראים כי הפרוטוקול תואם לתצורות ספקטרוסקופיית תהודה פרמגנטית אלקטרונים בתחום X ותומך בניתוח אקס ויבו מאוחר, מה שמגביר את הנגישות והשחזוריות בין מעבדות המשתמשות במכשור שונה.
למרות יתרונותיה, לשיטה יש מספר מגבלות. שיקול ביולוגי חשוב הוא שאות התהודה הפרהמגנטית של האלקטרון שזוהה משקף את החלק הפעיל של חמצון אדום בפולימר המלנין ולא את תכולת הפיגמנט הכוללת בלבד 15,21,33. בהתאם לכך, יש לפרש שינויים בעוצמת אות תהודה פרמגנטית אלקטרונית כשינויים בשיווי המשקל של החמצון הרדוקטורי הקשור למלנין ולא כתחליף ישיר לשפע המלנין. ניסויי הזנוגרפט האלבינו הראו כי בתנאים הנוכחיים של הניסוי, מספר תאי המלנומה שהוזרקו נשאר מתחת לסף הגילוי הישיר של ספקטרוסקופיית תהודה פרמגנטית אלקטרונית בתחום X. לכן, אות האורגניזם השלם שזוהה בזחלים נושאי זנוגרפט משקף בעיקר שינויים גלובליים במצב החמצון הקשור למלנין המארח, הנגרמים על ידי אינטראקציות גידול-מארח, ולא אות ספציפי למלנומה שמקורו בלעדית מהזרע. חשוב לציין שהמיקרו-סביבה של דג הזברה מציגה גרדיאנטים דינמיים של חמצן, אינטראקציות מטבוליות ותנאי לחץ חמצוני שעשויים גם לווסת את אוכלוסיות רדיקלי המלנין ב-vivo 19,20. ביישומי זנוגרפט, השיטה מוגבלת כיום למודלים של מלנומה בעלת פיגמנט גבוה, שכן נדרש ריכוז מלנין מספק לזיהוי אותות אמין. גידולים אמלנטיים או בעלי פיגמנט חלש עשויים שלא לייצר אותות ניתנים לזיהוי27. בנוסף, קווי התאים של המלנומה ששימשו במחקר זה (B16F10) מייצרים בעיקר אומלנין, מה שמוביל לקו תהודה פרמגנטי אלקטרוני יחיד. במודלים עם תרומה משמעותית לפיומלנין, חפיפה ספקטרלית עשויה להתרחש13. במקרים כאלה, יידרשו סימולציה ספקטרלית מתקדמת ודקונבולוציה כדי להבחין בין אותות יומלנין לפיומלנין.
עם זאת, תהליך העבודה המוצג מציע פוטנציאל רחב לחקר ביולוגיית מלנומה, ויסות מלנוגנזה המושרה על ידי תרופות, לחץ חמצוני ואינטראקציות בין גידול למארח ב-vivo. שילוב ספקטרוסקופיית תהודה פרמגנטית אלקטרונית עם הדמיית פלואורסצנציה, מדווחים גנטיים ובדיקות פנוטיפיות נוספות עשוי לשפר עוד יותר את הערך החיזוי של מודלים של דגי זברה במחקר פרה-קליני במלנומה ובפיתוח טיפולי.
גילויים
המחבר מיקולאי ברנובסקי מועסק בחברת Novilet, שמייצרת רכיבים של הספקטרומטר ששימש במחקר זה (אנלייזר רב-הרמוני). המחברים הנותרים מצהירים שאין להם אינטרסים מתחרים.
תודות
פרויקט "נימים חדשים ושיטה לקביעת רדיקל המלנין לשימוש במחקרים פרה-קליניים של תרופות פוטנציאליות למלנומה במודל העובר Danio rerio " FENG.02.07-IP.05-0059/23 בוצע במסגרת תוכנית FENG POC של הקרן למדע פולני, במימון משותף של האיחוד האירופי במסגרת קרנות אירופה לכלכלה חכמה 2021–2027 (FENG). מחקר זה נתמך על ידי האיחוד האירופי במסגרת תוכנית תפעול הצמיחה החכמה (מספר פרויקט POIR.01.02.00-00-00-0077/18).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1.5 mL או 0.5 mL צינורות אפנדורף | Eppendorf | 0030120086, 0030121023 | להעברת זחלי דג זברה לקפילרי |
| צינורות פסטר חד פעמיים של 3 mL | Medlab Products | 76-1303-2 | למיון והעברת עוברים וזחלים |
| ספקטרומטר EPR בנד X שולחני MiniScope MS200 | Magnettech | Bruker.com | רישום ספקטרום EPR |
| סידן כלוריד, דיהידרט | Chempur | 363-118748706 | להכנת מדיום E3 |
| שקופיות ספירת תאים (למשל, EVE או EVE PLUS) | Nanoentek Inc | NC2200445 | למונה תאים |
| CellTracker Green | Thermo Fisher | C2925 | צבע מעקב תאים פלואורסצנטי, לסימון תאים |
| CM-DiI | Thermo Fisher | C7000 | צבע מעקב תאים פלואורסצנטי, לסימון תאים |
| חממת CO2 ICO240med | Memmert | N/A | לתחזוקת תאים, מוגדר ל-37°C, 5% CO2, ≥95% לחות |
| מונה תאים אוטומטי Countess II | Invitrogen | AMQAX1000 | לספירת תאים ודחיסות תאים |
| קופסאות אחסון קריוגניות CryoKING | Biologix | BGX-ID81 | לאחסון דג זברה עם חומרת מושתל |
| מדיום קריופרזרבציה CM-1 | Cytion | #800150 | להקפאה של תאים סרטניים |
| מדיום דולוקה שונה (DMEM), גלוקוז גבוה, גלוטמין, ללא נתרן פירובט | Gibco | #11965-092 | לתחזוקת תרביות תאים |
| מדיום E3 | תוצרת בית | N/A | להחזקת עוברים/זחלים של דג זברה, הוכן על פי Cold Spring Harb Protoc 2011, doi: 10.1101/pdb.rec066449 |
| חממת ביצים | Incubato | 10130024 | להדגרת עובר/זחל של דג זברה, מוגדר ל-28–32°C |
| תוכנת eSpect+ | Novilet | https://novilet.eu/products/espect/ | למנתח רב-הרמוני |
| סרום בקר עוברית (FBS) | Gibco | A5256701 | תוסף ל-DMEM |
| מלקטות עדינות, מצופות קרמיקה, Dumont #5, 11 ס ³ | Dumont SA | 11252-50 | להסרת קליפת זחלי דג זברה |
| קפילריות זכוכית שטוחות המיועדות לדג זברה (מספר יישום: 21 736) | N/A | N/A | למדידות EPR של עוברי דג זברה |
| מחטים קפילריות מזכוכית | Harvard Apparatus | GB100-10 | ללא חוט, למיקרו-זריקות |
| קפילריות המטוקריט (מיקרופיפטות BLAUBRAND חד פעמיות של BRAND), נפח 50 ו-100 µL | BRAND | 41121500 | למדידות EPR או להעברת זחלי דג זברה לקפילריה שטוחה |
| מגנזיום כלוריד, הקסה-הידרט | Chempur | 363-116120500 | להכנת מדיום E3 |
| מערכת מיקרו-זריקה עם מיקרומניפולטור FemtoJet | Eppendorf | EPE5252000021 | להטעינת תאים למחטי מיקרו |
| טיפים Microloader לטעינת מחט | Eppendorf | #5242956003 | למערכת מיקרו-זריקה |
| שורת תאי מלנומה בעכבר B16-F1 | Cytion | CLS-400122 | להשתלות זרות |
| שורת תאי מלנומה בעכבר B16-F10 | Cytion | 305157 | להשתלות זרות |
| מנתח רב-הרמוני eSpect+ | Novilet | https://novilet.eu/products/espect/ | לספקטרומטר EPR, להגברת הרגישות |
| תמיסת פניצילין-סטרפטומיצין | Sigma | P0781-50ml | אופציונלי, תוסף ל-DMEM לתרבית תאים |
| צלחת פטרי, 55 ממ | Medlab Products | 51-0056-0A-NX | להדגרת ביצי דג זברה, עוברים וזחלים |
| מאגר פוספט מאוזן (PBS), ללא סידן ומגנזיום | Sigma | D8537-500ml | לשטיפת תאים |
| אשלגן כלוריד | Chempur | 363-117397402 | להכנת מדיום E3 |
| ערכת איטום לקפילריות המטוקריט - Critoseal | Noxygen | NOX-A.3-VPC | למדידות EPR של עוברי דג זברה |
| נתרן כלוריד | Chempur | 363-117941206 | להכנת מדיום E |
מקורות
- Karkoszka, M., Rok, J., Wrześniok, D. Melanin biopolymers in pharmacology and medicine–skin pigmentation disorders, implications for drug action, adverse effects and therapy. Pharmaceuticals. 17 (4), 521(2024).
- Song, W., et al. Melanin: Insights into structure, analysis, and biological activities for future development. J Mater Chem B. 11 (32), 7528-7543 (2023).
- Terranova, M. L. Physiological roles of eumelanin- and melanogenesis-associated diseases: A look at the potentialities of engineered and microbial eumelanin in clinical practice. Bioengineering. 11 (8), 756(2024).
- Mostert, A. B. Melanin, the what, the why and the how: An introductory review for materials scientists interested in flexible and versatile polymers. Polymers. 13 (10), 1670(2021).
- Mostert, A. B. On the free radical redox chemistry of 5,6-dihydroxyindole. Chem Phys. 546, 111158(2021).
- Sealy, R. C. Radicals in melanin biochemistry. Methods Enzymol. 105, 479-483 (1984).
- Seagle, B. -L. L., et al. Time-Resolved Detection of Melanin Free Radicals Quenching Reactive Oxygen Species. J Am Chem Soc. 127 (32), 11220-11221 (2005).
- Qin, W., et al. Evidence for the generation of reactive oxygen species from hydroquinone and benzoquinone: Roles in arsenite oxidation. Chemosphere. 150, 71-78 (2016).
- Slominski, R. M., et al. Melanoma, melanin, and melanogenesis: The yin and yang relationship. Front Oncol. 12, 842496(2022).
- Becker, A. L., Indra, A. K. Oxidative stress in melanoma: Beneficial antioxidant and pro-oxidant therapeutic strategies. Cancers (Basel). 15 (11), 3038(2023).
- Cassar, S., et al. Use of zebrafish in drug discovery toxicology. Chem Res Toxicol. 33 (1), 95-118 (2020).
- Horzmann, K. A., Freeman, J. L. Making waves: New developments in toxicology with the zebrafish. Toxicol Sci. 163 (1), 5-12 (2018).
- Van Rooijen, E., Fazio, M., Zon, L. I. From fish bowl to bedside: The power of zebrafish to unravel melanoma pathogenesis and discover new therapeutics. Pigment Cell Melanoma Res. 30 (4), 402-412 (2017).
- Tao, J., et al. Apoptosis-sensing xenograft zebrafish tumor model for anticancer evaluation of redox-responsive cross-linked pluronic micelles. ACS Appl Mater Interfaces. 14 (35), 39775-39786 (2022).
- Hason, M., Bartůněk, P. Zebrafish models of cancer–new insights on modeling human cancer in a non-mammalian vertebrate. Genes (Basel). 10 (11), 935(2019).
- Hamre, K., et al. Systemic and strict regulation of the glutathione redox state in mitochondria and cytosol is needed for zebrafish ontogeny. Biochim Biophys Acta Gen Subj. 1868 (6), 130603(2024).
- Gauron, G., et al. Hydrogen peroxide (H2O2) controls axon pathfinding during zebrafish development. Dev Biol. 414 (2), 133-141 (2016).
- Cesareo, E., et al. An endogenous electron spin resonance (ESR) signal discriminates nevi from melanomas in human specimens: A step forward in its diagnostic application. PLoS One. 7 (11), e48849(2012).
- Nakagawa, K., Minakawa, S., Sawamura, D., Hara, H. Characterization of melanin radicals in paraffin-embedded malignant melanoma and nevus pigmentosus using X-band EPR and EPR imaging. Anal Sci. 33 (12), 1357-1361 (2017).
- Mignion, L., et al. Noninvasive detection of the endogenous free radical melanin in human skin melanomas using electron paramagnetic resonance (EPR). Free Radic Biol Med. 190, 226-233 (2022).
- Wehbi, M., Mignion, L., Joudiou, N., Harkemanne, E., Gallez, B. Highly sensitive detection of melanin in melanomas using multi-harmonic low frequency EPR. Mol Imaging Biol. 26 (3), 484-494 (2024).
- Chlewicki, W., Baranowski, M., Czechowski, T., Szczepanik, P. Performance of image reconstrucion algorithms in electron paramagnetic resonance tomography with multiharmonic analysis. 2017 IEEE 37th International Conference on Electronics and Nanotechnology (ELNANO), , 292-295 (2017).
- Beaumont, K. A., Mohana-Kumaran, N., Haass, N. K. Modeling melanoma in vitro and in vivo. Healthcare (Basel). 2 (1), 27-46 (2014).
- Marconi, A., Quadri, M., Saltari, A., Pincelli, C. Progress in melanoma modelling in vitro. Exp Dermatol. 27 (5), 578-586 (2018).
- Yin, J., et al. Zebrafish patient-derived xenograft model as a preclinical platform for uveal melanoma drug discovery. Pharmaceuticals. 16 (4), 598(2023).
- Fazio, M., Ablain, J., Chuan, Y., Langenau, D. M., Zon, L. I. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 20 (5), 263-273 (2020).
- The Zebrafish Information Network (ZFIN) Community. Tricaine. , ZFIN. Available from: https://zfin.atlassian.net/wiki/spaces/prot/pages/362220023/TRICAINE (2026).
- Martinez-Lopez, M., Póvoa, V., Fior, R. Generation of zebrafish larval xenografts and tumor behavior analysis. J Vis Exp. (172), e62373(2021).
- Vargas-Patron, L. A., et al. Xenotransplantation of human glioblastoma in zebrafish larvae: In vivo imaging and proliferation assessment. Biol Open. 8 (5), bio043257(2019).
- Schueler, J., et al. Impact of the injection site on growth characteristics, phenotype and sensitivity towards cytarabine of twenty acute leukaemia patient-derived xenograft models. Cancers (Basel). 12 (5), 1349(2020).
- Cabezas-Sáinz, P., Pensado-López, A., Sáinz, B. Jr, Sánchez, L. Modeling cancer using zebrafish xenografts: Drawbacks for mimicking the human microenvironment. Cells. 9 (9), 1978(2020).
- Miller, A., et al. Temperature-dependence of early development of zebrafish and the consequences for laboratory use and animal welfare. PLoS One. 20 (12), e0340193(2025).
- Godechal, Q., Ghanem, G. E., Cook, M. G., Gallez, B. Electron paramagnetic resonance spectrometry and imaging in melanomas: Comparison between pigmented and nonpigmented human malignant melanomas. Mol Imaging. 12 (4), 218-223 (2013).
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב