פרוטוקול זה מתאר הכנה על ספסל של רשתות זיקה חד-שכבתית Ni-NTA למיקרוסקופיה אלקטרונית קריוגנית (cryo-EM). שינוי משטח הרשת של מיקרוסקופ אלקטרוני העברה (TEM) זה לוכד באופן סלקטיבי קומפלקסים חלבונים ממוססים עם תיוג פוליהיסטידין, ובכך משפר את הקביעה המבנית על ידי ריכוז דגימות מדוללות וקשירת חלקיקים הרחק מממשק האוויר-מים.
מאמר שיטה
הכנה מפורטת של רשתות זיקה חד-שכבתית של Ni-NTA לניתוח מבני קריו-EM של קומפלקסים מסיסים של חלבונים מסוסים עם תגית פוליהיסטידין
במאמר זה
סיכום
תקציר
הכנת דגימת קריו נותרה אתגר טכני מרכזי לקביעת קומפלקסים מבניים ברזולוציה גבוהה. אינטראקציות בממשק האוויר-מים יכולות לגרום לדנאטורציה של חלבונים או לכיוון מועדף, ובכך להגביל את הרזולוציה האפשרית. בנוסף, דגימות מדוללות או מטרות בעלות שפע נמוך לעיתים מציגות צפיפות חלקיקים לא מספקת, מה שמקשה על איסוף נתונים יעיל. רשתות זיקה מבוססות שומנים מספקות אסטרטגיה יעילה להתמודדות עם מגבלות אלו. מאמר זה מציג פרוטוקול שלב אחר שלב להכנת רשתות זיקה חד-שכבתיות Ni-NTA לניתוח מבני של קומפלקסים חלבונים מסיסים עם תיוג פוליהיסטידין. השלבים העיקריים של הפרוטוקול כוללים הכנת תערובת ליפידים, יציקת תערובת השומנים על פני משטח בופר מאגר, העברת שכבת הליפידים המונולרית שנוצרת לרשתות TEM, ייבוש ואחסון אופציונליים של רשתות השומנים למשך עד שבוע, והקפלה קריוג'ית של רשתות הליפידים עם הדגימה. יישום מוצלח של פרוטוקול זה מניב רשתות קריו המכילות שכבה אחת של חלקיקים מפוזרים היטב עם צפיפות חלקיקים משופרת יחסית לרשתות שהוכנו ללא מונולייר ליפידי. ההליך ניתן להשלים תוך מספר שעות במעבדה המצוידת בפומפה קריולוגית, מכסה אדים כימי וכלים סטנדרטיים המשמשים בדרך כלל להכנת דגימות קריולוגיות. על ידי שילוב הוראות כתובות מפורטות עם הדגמות וידאו, עבודה זו שואפת לשפר את הנגישות, השחזור והאימוץ הרחב יותר של רשתות זיקה חד-שכבתיות Ni-NTA לשומן בקהילת הקריו-EM.
מבוא
טכניקות ניסיוניות לקביעת מבנה חלבונים, כולל קריסטלוגרפיה בקרני רנטגן, תהודה מגנטית גרעינית (NMR) ומיקרוסקופיה אלקטרונית קריוגנית (קריוגנית-EM), כולן מסתמכות על הכנת דגימה קפדנית. בניתוח חלקיקים בודדים (SPA) קריו-EM, איכות הדגימה היא לעיתים קרובות הגורם המרכזי שמגביל את הסזולוציה של השחזור הסופי. ככל שההתקדמות הטכנולוגית במיקרוסקופים אלקטרוניים להעברת קריו (cryo-TEMs) וגלאי אלקטרונים ישירים ממשיכה לשפר את יעילות איסוף הנתונים ואת הרזולוציה האפשרית, האתגר המרכזי בקריו-EM ברזולוציה גבוהה עובר יותר ויותר מרכישת תמונה להכנת דגימה ואיכות 1,2,3,4,5,6,7.
הכנת קריו-גריד מסורתית כוללת בדרך כלל מריחת כמה מיקרוליטרים של דגימה על פני השטח של רשת מיקרוסקופיית אלקטרונים (TEM), סימון הרשת בנייר סינון, והטבילה מהירה בקריווגן, בדרך כלל אתאן נוזלי או תערובת פרופאן–אתאן. באופן אידיאלי, הקריו-גריד המתקבל מכיל קרח זגוגי דק עם חלקיקים מונודיספוזיים. בפועל, השגת תוצאה זו לעיתים קשה ועלולה לדרוש מספר סבבי אופטימיזציה ליצירת רשתות המתאימות לקביעת מבנים ברזולוציה גבוהה. בעיות נפוצות כוללות דנאטורציה של חלבונים בממשק האוויר-מים (AWI)8,9, כיווןמועדף 10 וצפיפות חלקיקים נמוכה בתוך שכבת הקרח 11,12. האתגר האחרון משמעותי במיוחד עבור קומפלקסים חלבונים שהם דינמיים מאוד, קצרי חיים או קשים לבידוד בריכוזי מיקרומולר. פותחו מספר אסטרטגיות להתמודדות עם מגבלות אלו, כולל תחמוצת גרפן13, פחמן14 דק במיוחד רציף וננו-חרוזים מצופים סטרפטווידין ללכידת מטרות ביוטיניליות15.
גישה חלופית כוללת שינוי רשתות TEM עם משטחי זיקה שנועדו לקשור מולקולות יעד באופן סלקטיבי. רשתות זיקה אלו יכולות לרכז חלקיקים על פני הרשת תוך הפחתת החשיפה ל-AWI, ובכך לשפר את התפלגות החלקיקים ולשמור על שלמות המבנה. בנוסף, אפקט הריכוז יכול להעשיר קומפלקסים מקרומולקולריים בעלי שפע נמוך מדגימות מדוללות או הטרוגניות.
בעשור האחרון פותחו מספר אסטרטגיות רשת זיקה עבור SPA קריו-EM. גישות אלו יכולות להיות מסווגות לפי שינוי משטח רשת TEM ואסטרטגיית הפונקציונליזציה המתאימה. משטחים נפוצים כוללים פחמן אמורפי דק במיוחד, גרפן14 או תחמוצת גרפן 13,16, מונולייר ליפידי או ננו-צינורות ליפידיים 17,18, וגבישי סטרפטווידין דו-ממדיים שגדלו על מונו-שכבות ליפידיות 19,20. מבין הגישות הללו, רשתות זיקה דו-ממדיות לסטרפטווידין הצליחו במיוחד באפשרות קביעת מבנה חלבונים ברזולוציה גבוהה 21,22,23,24,25,26,27,28,29. שיטות קשורות כוללות שימוש בסטרפטווידין חד-חלקיקי מונודיפיזור הקשור לשכבות מונופידיות, שהוחל לאחרונה לקביעת מבנה קומפלקס תחזוקת מיני-כרומוזום הקשור ל-DNA דו-גדילי (dsDNA)30.
למרות ההתקדמות הזו, שיטות נגישות וניתנות לשחזור להכנת רשת זיקה נותרות מוגבלות. לכל טכניקה יש דרישות דגימה ייחודיות לקישור סלקטיבי למטרות, ואף אחת אינה זמינה מסחרית, מה שמחייב פרוטוקולי ייצור מיוחדים ושינויים כימיים. שלבים נוספים אלו יכולים להגדיל משמעותית את המורכבות הטכנית של תהליכי עבודה קריו-EM מסוג SPA. בהתאם לכך, מאמר זה מציג פרוטוקול מפורט שלב אחר שלב שמטרתו להקל על הכנת טכנולוגיית רשת הזיקה המתוארת כאן. פרוטוקול רשת הזיקה לשכבה מונופידית Ni-NTA יושם באופן שגרתי בעברוניתן לאמץ בקלות למחקרים מבניים קריו-EM של קומפלקסים חלבונים ממוססים עם תיוג פוליהיסטידין בטווח משקל מולקולרי רחב (97–470 kDa) (איור 1). השיטה תואמת לריכוזי חלבון הנעים בין 0.05 ל-0.2 מ"ג/מ"ל בבופרים ללא חומר ניקוי.
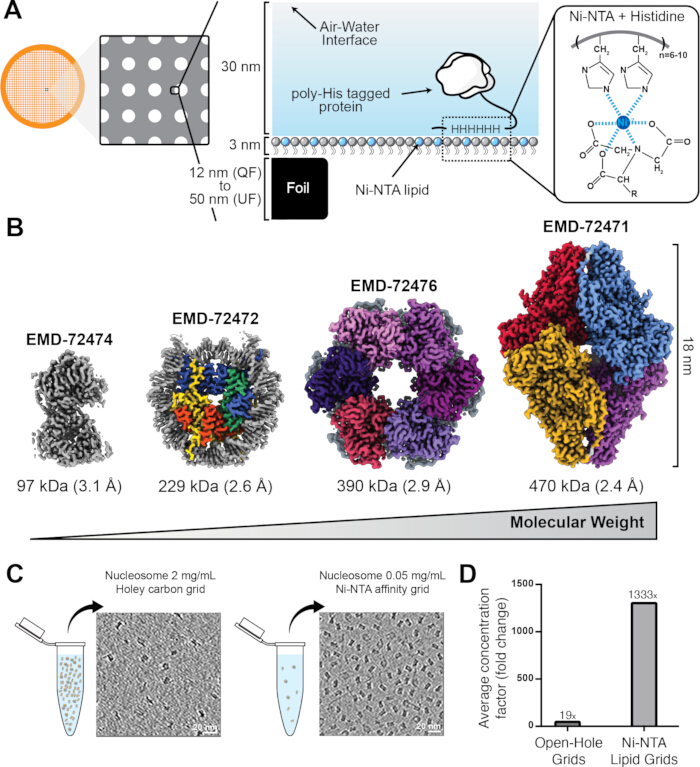
איור 1: סקירה של עיצוב רשת הזיקה לשומנים Ni-NTA. (א) סכמטי של רשת קריו שומנית של 20% Ni-NTA. רשת הקריו מוצגת משמאל, עם תצוגת חתך של שכבת המונולייר השומנית הממחישה את מידות שכבת הפחמן, שכבת הקירור השומנית, קרח הזגוגית והחלקיקים המחוברים (במרכז). האינטראקציה בין שרשראות צד היסטידין לשומן Ni-NTA מוצגת מימין. (B) דוגמאות לחלבונים עם תיוג פוליהיסטידין שנפתרו באמצעות רשתות זיקה ליפידית. המפות מצוירות לפי קנה מידה יחסית זו לזו, עם משקל מולקולרי, גודל, רזולוציה ומספר גישה ל-EMDB. (C) פרוסות טומוגרפיות מייצגות של נוקלאוזומים מתויגים בפוליהיסטידין, שהוכנו באמצעות קריו-גרידי לא-ליפידים בעוצמה של 2 mg/mL (מימין) ו-Ni-NTA קירור ליפידי זיקה ב-0.05 mg/mL (משמאל). (D) פקטור ריכוז ממוצע של רשתות קריו שאינן שומניות בהשוואה לקריו-רשתות Lipiity Lipiity Ni-NTA, מה שמדגים את יכולת שכבת השומן לרכז חלבונים מסומנים בפוליהיסטידין הרחק מממשק האוויר-מים (AWI). חלקים מהאיור הותאמו מהאיורים 1A,B ו-2A,B בסקראינה ואח' 17 באישור אלסווייר. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
פרוטוקול
מחקר זה לא כלל משתתפים אנושיים, נתונים קליניים או בעלי חיים חיים. החומרים והציוד בהם משתמשים מופיעים בטבלת החומרים.
הערה: DOPC מתייחס ל-PC 18:1 (Δ9-cis). שומן Ni-NTA מתייחס ל-18:1 DGS-NTA(Ni). בופר דל מלח מתייחס ל-HEPES של 10 mM (pH 7.4) עם 50 mM NaCl. בופר דילול מתייחס ל-HEPES של 20 mM (pH 7.4) עם 150 mM NaCl.
1. שטיפת כלי זכוכית רב-פעמיים (~30 דקות)
- אסוף שתי צלחות פטרי קטנות, שני כיסויי צלחות פטרי קטנים, בקבוקון נפחי אחד בנפח 25 מ"ל עם פקק, ובקבוקון נפחי אחד בנפח 1 מ"ל עם פקק. הנח את הפריטים ליד הכיור.
- המיס אבקת סורפקטנט אניוני במי ברז חמים באמבט פלסטיק בנפח 11.4 ליטר.
- טבלו בעדינות את כלי הזכוכית בתמיסת הסורפקטנט.
- כשאתה לובש כפפות ניטריל, שפשף את כל משטחי הזכוכית הנגישים עם מברשת כלי מעבדה. שטוף היטב עם מים אולטרה-טהורים.
- הסר מים שנותרו על ידי טפיחה עדינה על כלי הזכוכית על מגבות נייר.
- ייבשו את כלי הזכוכית עם מייבש שיער עד שלא נשארת לחות נראית לעין.
הערה: אחסן כלי זכוכית שטופים בסביבה נקייה וללא אבק.
2. איזון שומנים לטמפרטורת החדר (1–4 שעות)
הערה: אם מלאי השומנים הוכן מראש, דלג על סעיף זה.
- הניחו אמפולה אטומה של אבקת DOPC של 25 מ"ג ואפולה אטומה אחת של אבקת שומן Ni-NTA 1 מ"ג בתוך מכסה אדים כימי.
- איזון את הליפידים לטמפרטורת החדר לפחות לשעה אחת.
3. הקמת תחנת ניקוי הממס (~10 דקות)
זהירות: כלורופורם הוא נוזל מסוכן ונדיץ הפועל כמדכא מערכת העצבים המרכזית וכמגרה לעור, לעיניים ולנשימה. בצע את כל השלבים הכוללים יותר מ-100 מיקרוליטר כלורופורם במכסה אדים כימי תוך לבישת ציוד מגן אישי (PPE) מתאים, כולל כפפות, חלוק מעבדה והגנה על העיניים. הסר והשליך כפפות ניטריל מזוהמות תוך דקה אחת מהחשיפה, שכן כלורופורם חודר במהירות לניטריל. אין לשלב פסולת כלורופורם עם זרמי פסולת כימית אחרים.
- אספו 99.8% כלורופורם, בקבוק פסולת כלורופורם עם מכסה, 99.5% אתנול, בקבוק פסולת אתנול עם מכסה, מיכל חד אחד, שני צלחות פטרי קטנות, שני מכסי פטרי קטנים, צלחת פטרי גדולה אחת עם נייר פילטר דרגה 1, שלושהאו יותר חתיכות סרט אטום עצמי באורך 1–2 ס"מ, ומגבות נייר. סדר את כל החומרים במכסה האדים הכימי (איור 2).
- שטפו את צלחות הפטרי ב-20–30 מ"ל כלורופורם. השליכו את השטיפה לבקבוק הפסולת המתאים. חזור על זה עם אתנול. ייבשו את הכלים באוויר.
- מלאו צלחת פטרי קטנה בכלורופורם ואת השנייה באתנול. כסו את שני הכלים כדי למזער אידוי.
- למלא מחדש את צלחות הפטרי לאורך כל הניסוי, במיוחד כאשר הכלורופורם הופך לעכור לעין מזהמים.
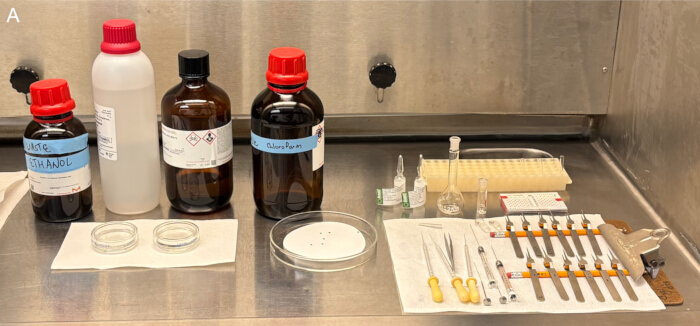
איור 2: מכסה אדים כימי המכיל כלים ותגובות להכנת תערובת שומן. תמונה של תחנת ניקוי הממס וכלים מנוקים, כלי זכוכית ורשתות TEM. בקבוקים משמאל לימין: פסולת אתנול, אתנול, כלורופורם ופסולת כלורופורם. צלחות פטרי משמאל לימין: אתנול, כלורופורם ורשתות TEM על נייר סינון. פריטים נוספים משמאל לימין ומלמעלה למטה כוללים צינורות תרבית במתקן צינורות, אמפולות שומן, בקבוקי נפח עם פקקים, רשתות TEM מאוחסנות, פיפטות זכוכית עם נורות, פינצטה עם קצה דק, מזרקי זכוכית ופינצטה אנטי-קפילרית עם מרווחים (קטעי עיפרון) שהוכנסו. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
4. כלי ניקוי, כלי זכוכית ורשתות TEM עם ממסים (~20 דקות)
- אסוף זוג פינצטה דקה, שתים עשרה זוגות פינצטה נגד נימים נסגרים בעצמם, שלוש פיפטות זכוכית, מזרק זכוכית אחד בנפח 25 מיקרוליטר, מזרק זכוכית אחד בנפח 2.5 מיקרוליטר, שלושה צינורות תרבית זכוכית במתקן צינורות, בקבוק נפחי אחד בנפח 25 מ"ל עם פקק, בקבוק נפחי אחד בנפח 1 מ"ל עם פקק, עשרים עד עשרים וחמש בקבוקי זכוכית מושחלים בנפח 3.7 מ"ל עם פקעות פנוליות, ושתים-עשרה רשתות TEM עם פחמן חורי מרשת זהב. הנח את החומרים ליד תחנת ניקוי הממס בתוך מכסה האדים הכימי.
הערה: יש להחדיר מרווח, כמו קצה עיפרון, לכל זוג פינצטה אנטי-קפילרית כאשר אינם בשימוש, כדי למנוע עיוות וחוסר יישור בקצה. זרוק פינצטה כפופה. - נקה את הפינצטה על ידי הטבלת הקצוות בכלורופורם מספר פעמים. חזור על זה עם אתנול. להתייבש באוויר.
- נקה את פיפטות הזכוכית על ידי שאיבת והזנת כלורופורם מספר פעמים. חזור על זה עם אתנול. להתייבש באוויר.
- נקה את המזרקים על ידי שאיפת ומתן כלורופורם עד שהפלוגר זז בצורה חלקה. חזור על זה עם אתנול. הסר את הבוכנה מקנה המזרק וייבש באוויר.
- נקה את צינורות התרבית על ידי הוספת והסרה של כלורופורם מספר פעמים עם פיפטת זכוכית. חזור על זה עם אתנול. הסר נוזל שנותר על ידי הפיכת הצינורות והקשה עדינה על מגבות נייר. להתייבש באוויר.
- נקה את הבקבוקים הנפחיים על ידי הוספת כלורופורם עם פיפט זכוכית, סגירת הבקבוק, וערבוב עדין לשטיפה של המשטחים הפנימיים. זרקו את הממס לבקבוק הפסולת. חזור על זה עם אתנול. השאר את הבקבוקים פתוחים ויבש באוויר.
- נקה את המבחנות על ידי הוספת כלורופורם עם פיפטת זכוכית, סגירת הבקבוקון, וערבוב עדין לשטוף את המשטחים הפנימיים. זרוק את הממס. חזור על זה עם אתנול. השאירו את הבקבוקונים לא מכוסים וייבשו באוויר.
- נקה את רשתות ה-TEM על ידי אחיזה בקצה החיצוני המחוזק עם פינצטה דקה, תוך הימנעות מנזק לשכבת הפחמן. טבלו את הרשתות אנכית בכלורופורם שלוש פעמים, ואז באתנול שלוש פעמים.
- מניחים את צד הפחמן של רשתות ה-TEM כלפי מעלה על נייר הסינון ותנו להם להתייבש באוויר.
5. קירור בופר ההטלה (>20 דקות)
- הנח לפחות 50 מ"ל של בופר דל מלח על הקרח.
- קרר את הבופר לפחות 20 דקות.
6. הכנת תמיסות נפרדות של 1 מ"ג/מ"ל כלורופורם של DOPC וליפיד Ni-NTA (~20 דקות)
הערה: אם מלאי השומנים הוכנו מראש, דלג לסעיף 8, "הכנת תערובת השומנים של 80% DOPC/20% Ni-NTA."
- ודאו שאבקות השומן DOPC ו-Ni-NTA התאזנו לטמפרטורת החדר.
אזהרה: סכינים וזכוכית שבורה הם סכנות חדות. יש להיזהר בעת שימוש בסכין גילוח ושבירת אמפולות זכוכית. - כדי לשפר את הנראות של אבקת ה-DOPC, הסר את תווית האמפולה על ידי חיתוך עם סכין גילוח וקילוף. חזור על זה עבור אמפולת השומן Ni-NTA.
- בעזרת שתי הידיים ועבודה על מיכל החדים, שברו בזהירות את האמפולה המכילה 25 מ"ג DOPC. השליכו את צוואר האמפולה במיכל הדקים. הנח את גוף האמפולה ליד צלחת הכלורופורם. חזור על זה עבור אמפולת שומן Ni-NTA של 1 מ"ג.
- הבריש בזהירות שברי זכוכית מהכפפות ומשטחי העבודה לתוך המיכל החדים. החלף כפפות פגומות מיד.
- יש לסמן פיפטה מזכוכית אחת לכלורופורם, אחת ל-DOPC, ואחת לשומן Ni-NTA.
- מלאו צלחת פטרי קטנה שנוקתה בממס בכלורופורם.
- השתמש בפיפטת DOPC להעברת 2–5 מ"ל כלורופורם לאמפולה של DOPC. שואף ומשחרר את התמיסה עד שהשומן בתחתית ובצדדים מתמוסס לחלוטין.
- העבר את תמיסת ה-DOPC לבקבוק נפחי בנפח 25 מ"ל באמצעות פיפטת DOPC. הביאו את הבקבוק לנפח סופי של 25 מ"ל עם כלורופורם באמצעות פיפטת הכלורופורם.
- זרוק את אמפולת ה-DOPC במיכל הדיאז.
- העבר פחות מ-1 מ"ל כלורופורם לתוך הבקבוק הנפחי של 1 מ"ל באמצעות פיפטת הכלורופורם.
- השתמש בפיפטת השומן Ni-NTA כדי להעביר את הכלורופורם מהבקבוק הנפחי של 1 מ"ל לאמפולה השומנית Ni-NTA. שואף ומשחרר את התמיסה עד שהשומן בתחתית ובצדדים מתמוסס לחלוטין.
- העבר את תמיסת השומנים Ni-NTA לבקבוק נפחי בנפח 1 מ"ל באמצעות פיפטת ליפידים Ni-NTA. הביאו את הבקבוק לנפח סופי של 1 מ"ל עם כלורופורם באמצעות פיפטת הכלורופורם.
- השליכו את אמפולת השומן Ni-NTA במיכל השריפס.
7. הכנת אליקווטים קטנים של ליפידים לאחסון ארוך טווח (~15 דקות)
- השתמש בפיפטה של DOPC כדי לפרק 1–2 מ"ל של קת DOPC למספר בקבוקי זכוכית. תסגור ותסווג את הבקבוקונים.
- השתמש בפיפטת השומן Ni-NTA כדי לפרק 0.2–0.5 מ"ל של מאגר שומן Ni-NTA למספר בקבוקי זכוכית. תסגור ותסווג את הבקבוקונים.
אזהרה: חנקן נוזלי (LN2) הוא קריוגן שעשוי בתחילה לגרום לאפקט ליידנפרוסט קצר לפני שהוא גורם לכאב עז, נימול, שלפוחיות וכוויות קור. חומרת הפציעה עולה עם משך החשיפה ויכולה להתקדם מכוויות מדרגה ראשונה ועד רביעית בפחות מדקה אחת. עצמים שמקוררים על ידי LN2 עלולים לגרום לפציעות דומות. שים לב להולכה תרמית באמצעות כלי דגימות קריו-בעת הטיפול בהם ב-LN2. תלבשו מגן פנים כדי להגן מפני התזות. אין לטבול ידיים ב-LN2, אפילו כשאתה לובש כפפות מגן קריו, כי LN2 הכלוא עלול להישאר במגע עם העור. אל תבלבלו בין אדי מים אטמוספיריים מעובים לאדי LN2. LN2 מתרחב בנפח של כ-700× כאשר הוא הופך לחניק גזי בלתי נראה וחסר ריח. ודא שכל מיכלי ה-LN2 והדיווארים מאווררים כראוי כדי למנוע הצטברות לחץ. השתמש ב-LN2 רק באזורים מאווררים היטב ואידוי את LN2 הלא מנוצל בתוך מכסה אדים כימי. - מלא דוואר קריוגני קטן ב-LN2.
- הסר את הפקק מבקבוק אליקוט אחד, שפוך אדי חנקן לתוך הבקבוקון, סגר את הבקבוקון מחדש ואוטם אותו עם סרט אוטם עצמי. חזור על זה עבור כל הבקבוקים של אליקווט.
הערה: יש לאחסן את מלאי הליפידים בטמפרטורה של −20 מעלות צלזיוס למשך עד 3 חודשים.
8. הכנת תערובת השומנים של 80% DOPC/20% Ni-NTA (~15 דקות)
- ודא שהמלאי של DOPC ו-Ni-NTA מאוזנים לטמפרטורת החדר.
- תייג צינור זכוכית אחד ל-DOPC, אחד לשומן Ni-NTA, ואחד לתערובת השומן.
- השתמשו בפיפטה של DOPC להעברת 50–100 מיקרוליטר (2–3 טיפות) של ציר DOPC לצינור התרבית של DOPC. אטום את הצינור עם סרט אטום עצמי.
- השתמש בפיפטת השומן Ni-NTA להעברת 20–50 מיקרוליטר (1–2 טיפות) של מאגר שומנים Ni-NTA לצינור תרבית השומנים Ni-NTA. אטום את הצינור עם סרט אטום עצמי.
- השתמש במזרק בנפח 25 מיקרוליטר כדי למשוך 20 מיקרו-ליטר של אליקוט DOPC אל תוך קנה המזרק. וודא שהחבית אינה מכילה בועות ושרטט מחדש את הדגימה במידת הצורך. משחרר את האליקו לצינור תערובת השומן. חזור על זה פעם אחת לנפח כולל של 40 מיקרוליטר.
- נקה את המזרק עם כלורופורם ואחריו אתנול.
- השתמש במזרק כדי למשוך 10 מיקרוליטר של Lipid Aliquot של Ni-NTA. וודא שהחבית אינה מכילה בועות ושרטט מחדש את הדגימה במידת הצורך. מזרים את האליקווט לצינור תערובת השומן, ומביאים את הנפח הכולל הסופי ל-50 מיקרוליטר.
- ערבבו את השומנים על ידי שאיבת והזנה של התמיסה מספר פעמים. אטום את הצינור עם סרט אטום עצמי.
- נקה את המזרק עם כלורופורם ואחריו אתנול. להתייבש באוויר.
9. יציקת שכבת שומנים מונולרית והעברה לרשתות ה-TEM (~10 דקות)
- ודאו שהבופר דל המלח מקורר.
- אספו מנורת LED קטנה אחת, בופר דל מלח מקורר, בקבוק פסולת בופר עם מכסה, אתנול מגובה, בקבוק פסולת אתנול אחד, בקבוק שמן קיק עם טפטפת, תערובת השומנים, צלחת פטרי קטנה אחת, מזרק 2.5 מיקרוליטר, שנים-עשר זוגות פינצטה אנטי-קפילרית, שתים עשרה רשתות TEM ורקמות עם סיבים נמוכות. סדר את החומרים על שולחן עבודה שחור מואר היטב (איור 3).
- כוון את הזרוע השטוחה של כל זוג פינצטה אנטי-קפילרית לצד הפחמני של רשת TEM. מהדק את הרשת לאורך הקצה החיצוני המחוזק. חוזר על זה לכל הרשתות.
- מלאו את צלחת הפטרי הקטנה עד אפס מקום בבופר מקורר עם מלח נמוך (איור 4A). הנח טיפה אחת של שמן קיק במרכז משטח הבופר (איור 4B, 4C).
הערה: התקדמו במהירות בשלבים הבאים כי שכבת הליפידים מתרחקת בהדרגה ממרכז שמן הקיק עם הזמן, מה שמפחית את יעילות ההעברה. תנודות טמפרטורה ורעידות מאיצות את התהליך הזה. - השתמש במזרק של 2.5 מיקרוליטר כדי לשאוב 1 מיקרו-ליטר של תערובת ליפידים. הורידו את קצה מחט המזרק למרכז שמן הקיק. פזר את תערובת השומנים כטיפה התלויה על שיפוע המחט ממש מעל פני השטח, ואז נגע בעדינות בטיפה בשמן הקיק (איור 4D).
- השתמש במנורת ה-LED כדי לאשר היווצרות מעגל שומנים שטוח בקוטר 2–3 ס"מ, מוקף בטבעת של שמן קיק (איור 4E). אם מורפולוגיה זו לא נצפה, יש לאפס את תבנית היציקה על ידי השלכת הבופר, שטיפת הצלחת באתנול תגובה, ייבוש עם רקמות דלות סיבים, ויישום מחדש של בופר דל מלח, שמן קיק, ותערובת שומנים מחודשת.
הערה: עודף שמן קיק מעכב את היווצרות שכבת השומנים המונופידית, בעוד ששמן קיק לא מספק אינו מצליח להכיל את השכבה המונולרית. נזילות השומנים תלויה בטמפרטורה. אם הבופר קר מדי, השומן לא מתפשט לשכבה אחת. אם הבופר חם מדי, השומן ושמן הקיק נודדים לקצה הצלחת ומתמוטטים. שפכו בופר מקורר לצלחת פטרי בטמפרטורת החדר כדי להשיג פיזור שומנים מיטבי. לאפס את צלחת היציקה לפי הצורך אחרי כל העברת רשת. ודאו שכלי היציקה נקי לחלוטין משמן לפני הוספת בופר טרי. - העבר את שכבת הליפידים לרשת TEM על ידי הורדת רשת ה-TEM המהודקת למרכז יציקת השומן כאשר צד הפחמן פונה כלפי מטה. נגעו בעדינות בכל פני הפחמן בשכבת השומנים המונולייתית מבלי להטביע או לשחרר את הרשת (איור 4F).
- בדוק את רשת השומנים כדי לוודא כיסוי נוזלי מלא והיעדר שמן קיק (איור 5). להשליך רשתות שמנוניות.
- חזור על תהליך ההעברה לכל רשתות ה-TEM.
הערה: רשתות שומן מהודקות עשויות להתייבש תוך 5–10 דקות. רשתות הליפידים עשויות להישאר מהודקות על השולחן למשך הלילה לפני ההידרדציה. לחלופין, רשתות שומן מיובשות ניתן לשים בקופסת רשת ולאחסן במייבש בטמפרטורת החדר עד שבוע לפני החזרת ההידוק וההידרציה מחדש.
קריטי: המשך רק אם הקפאה תתרחש בתוך שעתיים. אחרת, תעכב את השלבים הנותרים.
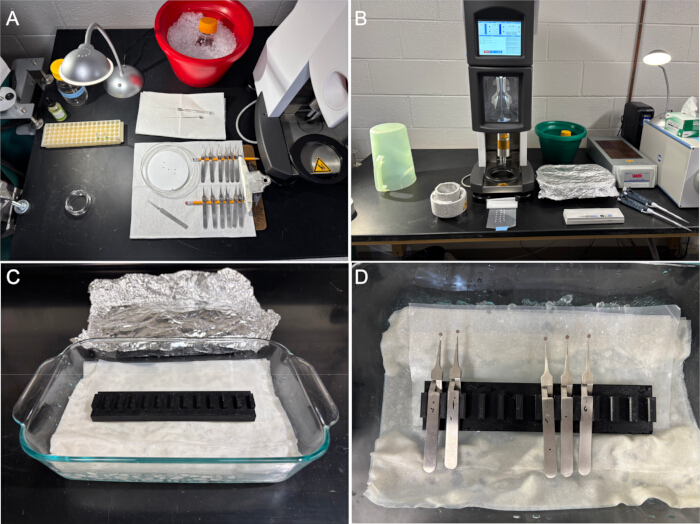
איור 3: הכנת ספסל ליציקת שכבות מונופידים והקפאת טבילה (plunge-pointing). (א) פריטים המוצגים משמאל לימין ומלמעלה למטה כוללים בקבוק טפטפת שמן קיק, בקבוק פסולת בופר, מנורת LED, בופר מקורר דל מלח על קרח, מתקן צינורות המכיל אליקווטים של שומנים ותערובת שומן, מזרק זכוכית בנפח 2.5 מיקרוליטר, צלחת פטרי ריקה, צלחת פטרי המכילה רשתות TEM על נייר סינון, פינצטה דקה, ופינצטה נגד נימים עם מרווחים מוכנסים בכניסה. (ב) הפריטים המוצגים כוללים בומפה קריו-מקוררת ולחה, סירת בוכנה קריו-מורכבת, דלי קרח המכיל בופר דילול ודגימה, תא לחות מכוסה בנייר כסף, סרט אטום ואטום עצמי עם קווי טיפות בופר דילול, פינצטה קריו-פלנגר ומיקרופיפטות. (ג) תא לחות על שולחן המכיל קרח, מגבות נייר רטובות, סרט אטום עצמי ומחזיק פינצטה בגרסת ספסל. (ד) רשתות שומן שמחוברות על ידי פינצטה אנטי-קפילרית בתוך תא הלחות על הספסל. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
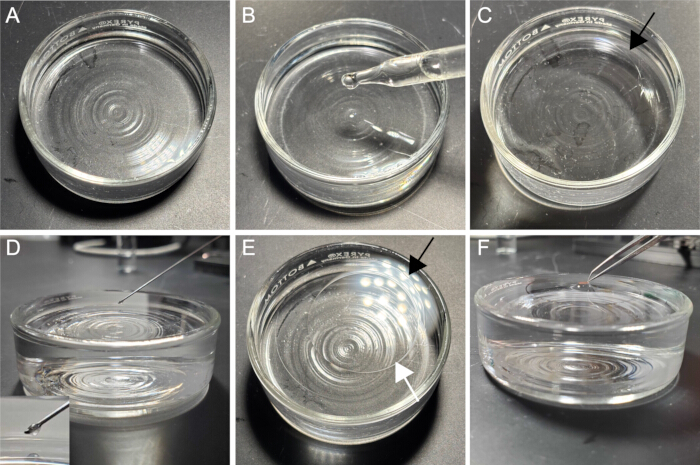
איור 4: יציקת מונולייר ליפידי והעברתה לרשתות TEM. (א) תבנית יציקה ממולאת בבופר דל מלח. (ב) מתן טיפה אחת של שמן קיק לצלחת היציקה. (ג) מעגל של שמן קיק הצף על פני הבופר; החץ השחור מציין את גבול שמן הקיק. (ד) מחט מזרק במרכז מעל שמן הקיק כשהקצה פונה כלפי מטה; טיפה של 1 מיקרוליטר של תערובת שומנים תלויה מקצה המחט. (ה) תערובת ליפידים המפוזרת בתוך טבעת של שמן קיק; החץ השחור מציין את גבול שמן הקיק, והחץ הלבן מציין את גבול שכבת המונופיל השומנית. (ו) העברת שכבת הליפידים לצד הפחמן של רשת TEM. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
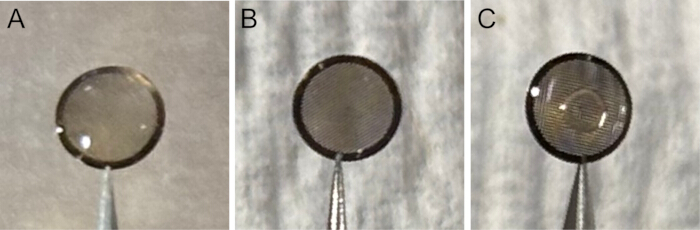
איור 5: דוגמאות לרשתות TEM לאחר העברת שכבה מונו-שכבת שומן. (א) העברת שומנים מוצלחת עם בופר המפוזר על פני כל משטח הרשת. (ב) העברת שומנים מוצלחת לאחר ייבוש באוויר למשך שעה. (ג) העברת שומנים מזוהמת בשמן קיק, נראית במרכז הרשת. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
10. דגירה של נייר בלוט בפומפה קריו-פלנגר בטמפרטורה של 4 מעלות צלזיוס ולחות של 100% (>1 שעה)
- כוון את תא הלחות של הקריו-פלנגר ל-4 מעלות צלזיוס ולחות של 100%.
- התקן נייר כתמים על רפידות הניגוד. דגרו את נייר הבלוט בלחות גבוהה לפחות שעה.
11. קירור מאגר הדילול (~20 דקות)
- הנח לפחות 20 מ"ל של בופר דילול על הקרח.
- קרר את הבופר לפחות 20 דקות.
12. דגירה של בופר דילול ברשתות השומנים (>15 דקות)
- אספו תבנית אפייה אחת, גרסה אחת של מחזיק פינצטה מודפס בתלת-ממד (קבצים משלימים 1–3), רצועת סרט אטומה עצמית ברוחב 25–35 ס"מ, רצועת נייר אלומיניום ברוחב 35–45 ס"מ, קרח ומגבות נייר. הניחו את החומרים ליד הפומפה הקפואה (איור 3).
- מקם את תבנית האפייה לאורכה ליד הבוכנה הקפואית. מלאו את הקערת עד חצי הקרח, ואז כסו אותה במגבות נייר. הרטיב בעדינות את מגבות הנייר במי ברז.
- מקם את רצועת הסרט האטומה לאורכה על החצי הרחוק של תבנית האפייה, ישירות מעל מגבות נייר רטובות.
- מקם את מחזיק הפינצטה המודפס בתלת-ממד לאורך במרכז תבנית האפייה, ישירות על מגבות נייר רטובות וסרט אוטם עצמי.
- כסו את תבנית האפייה בנייר אלומיניום (איור 3).
- להחליף קרח מותך לאורך כל הניסוי.
- הניחו את רשתות השומנים המהודקות בתא הלחות של השולחן מעל הסרט האטום-עצמי כאשר צד השומנים פונה כלפי מעלה (איור 3).
הערה: הימנעו מהזזת תא הלחות של שולחן העבודה או מגע ברשתות השומנים עם קצה פיפטה, כי פעולות אלו עלולות להזיז את הרשתות. אסוף כל רשת שנופלת על הסרט האטום-עצמי אם הרשתות נשארות ללא נזק. - מרח 2 מיקרו ליטר של בופר דילול דגימה על כל משטח שומן. כסו את התא בנייר כסף כדי למזער את האידוי.
- שמור על הידרציה של כל רשת שומנים על ידי הוספת 2 מיקרוליטר נוספים של בופר דילול בכל פעם שפחות מ-1 מיקרוליטר נוזל נשאר ברשת.
- איזון את רשתות השומן המיובש בתא הלחות הקר למשך לפחות 15 דקות.
13. דגירה של הדגימה ברשתות השומנים (>15 דקות)
- ודא שרשתות השומן היו מיובשות עם בופר דילול ברציפות למשך לפחות 15 דקות.
- ודאו שבופר הדילול המקור מקורר לחלוטין.
- יש להניח 3 מיקרוליטר של דגימה עם תגית פוליהיסטידין על כל רשת ליפידים הידרטית. כסו את התא בנייר כסף כדי למזער את האידוי.
- שמור על הידרציה של כל רשת שומנים על ידי הוספת 2 מיקרוליטר נוספים של בופר דילול בכל פעם שפחות מ-2 מיקרוליטר נוזל נשאר ברשת.
- דגרו את הרשתות לפחות 15 דקות.
14. הכנת סיר הקריו-פלנגר (>15 דקות)
- הרכיבו את סיר הקריו-פלנג'ר, כולל הציר המשמש לקירור עקיף של הפליז.
- תייגו את קופסאות הקריו-גריד והניחו אותן בתוך כלי הקריו-פלגר.
- מלא את סיר הקריו-פלנג'ר ב-LN2. כסו את הסיר כדי למזער זיהום קרח.
- שמרו על רמת LN2 מעל תיבות הקריו-גריד על ידי הוספת LN2 נוסף מדי פעם.
- קרר את רכיבי המתכת ותיבות הקריו-גריד לטמפרטורת LN2 לפחות 10 דקות.
אזהרה: פרופאן נוזלי ואתאן הם קריוגנים דליקים מאוד שגורמים לפציעות דומות ל-LN2 אך חסרי אפקט ליידנפרוסט בולט. כתוצאה מכך, מגע עלול לגרום לפציעה מיידית ומתמשכת. הימנעו מהתזות במהלך הטיפול. אם פרופאן-אתאן מזהם את LN2, יש לטפל ב-LN2 המזוהם באותם אמצעי זהירות מוגברים כמו פרופאן ואתאן נוזליים. לאחר השימוש, הניחו את סיר הקריו-פלנגר בתוך מכסה אדים כימי כדי לאפשר לקריוגנים להתאדות בבטחה. - מלאו את הפליז בתערובת נוזלית של פרופאן-אתאן ביחס של 60:40.
- איזון את תערובת הפרופן-אתאן לטמפרטורת LN2 לפחות 5 דקות.
15. הקפאה של רשתות השומנים (~1 שעה)
- ודאו שנייר הכתמים התאזן ב-4 מעלות צלזיוס ולחות של 100% לפחות לשעה.
- ודא שרשתות הליפידים התפתחו עם דגימה עם תגית פוליהיסטידין למשך לפחות 15 דקות.
- אמת שטמפרטורת הפרופן-אתאן מתחת ל-190 מעלות צלזיוס, ואז הסר את הציר.
- יש לפזר שלוש טיפות של בופר דילול בנפח 50 מיקרוליטר בשורה על חתיכת סרט אטומה עצמית בקוטר 10 ס"מ2 (איור 3).
- שטפו רשת שומנים מהודקת אחת על ידי מגע רציף עם פני השומנים לכל טיפת בופר דילול ושחרור הרשת בטיפה האחרונה.
- השתמשו בפינצטה הקפואה כדי לאסוף את רשת השומנים הצפה. התקן את הרשת לתוך הפומפה הקפואה.
- ספג את טיפות הבופר עם טישו ללא סיבים וזרוק אותן.
- יש להפעיל את הגדרות הקריו-פלנגר הבאות על רשת השומנים לפני הקפאה בתערובת פרופאן-אתאן: זמן המתנה, 0 שניות; כתם מוחלט, 1; כוח הכתם, −10; זמן כתימה, 4 שניות; וזמן הניקוז, 0 שניות.
- העבר את הקריו-גריד מכוס הפרופאן-אתאן לחריץ פנוי בקופסת קריו-גריד.
- חזור על הליך ההקפאה לכל רשתות השומן.
תוצאות
כדי להמחיש את התוצאות הצפויות של פרוטוקול זה, נערכה סדרת ניסויים. רשתות TEM של הולי-פחמן R1.2/1.3 עם ובלי שכבות שומן של 20% Ni-NTA הוקפאו עם הדגימה וצולמו באמצעות קריו-TEM של 200 keV. לכל תנאי, צולמו 3–9 ריבועי רשת. עובי הקרח השתנה בין רשתות וריבועים בודדים, כאשר אזורים אופטימליים הכילו קרח זגוגי דק וחלקיקים מוטמעים היטב, כפי שאומת על ידי טבעות תון אופייניות בטרנספורמציית פורייה המהירה (FFT)31.
בניסוי הראשון, נעשה שימוש ב-Staphylococcus aureus glutamate synthase (saGS) עם סימון פוליהיסטידין מטוהר להדגמת ההכנה האופטימלית והביצועים הצפויים של רשתות זיקה חד-שכבתיות Ni-NTA של 20% Ni-NTA (איור 6). מונולייר שומנים הועברו לרשתות TEM ברשת זהב. רשתות השומנים יובשו ואוחסו במייבש במשך שבוע לפני ההידרציה מחודשת. לאחר הידרציה מלאה, saGS ב-0.1 mg/mL דוגר ברשתות למשך 15–30 דקות כדי לאפשר קישור חלקיקים. חלקיקי saGS, עם ממוצע של 274 חלקיקים למיקרוגרף (N=7), הופיעו מפוזרים באופן שווה על פני שכבת השומנים עם חפיפה מינימלית או ללא חפיפה כלל.
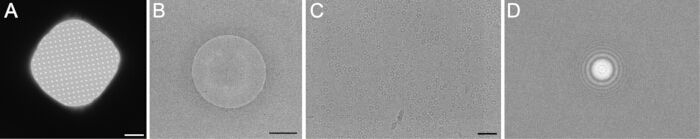
איור 6: תמונות קריו-TEM מייצגות של רשת זיקה לשומנים של 20% Ni-NTA. שכבת הליפידים יובשה במשך שבוע והורטבה מחדש עם בופר דל מלח כפי שמתואר בפרוטוקול. תמונות מייצגות נאספו בהגדלה נמוכה (A), ביניים (B) וגבוהה (C), כאשר FFT המתאים הוצגו ב-(D). חלקיקים, עם ממוצע של 274 חלקיקים למיקרוגרף (N = 7), מפוזרים באופן שווה על פני הרשת בתוך שכבת קרח זגוגית דק. פסי קנה מידה: 10 מיקרון, 500 ננומטר ו-50 ננומטר. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
בניסוי השני, דגימות saGS המציגות ערימת חלקיקים שימשו להדגמת השפעות רשתות השומנים על הצטברות חלבונים (איור 7). נבדקו ארבעה תנאי קריו-גריד: saGS ב-1.0 מ"ג/מ"ל על רשתות רשת נחושת ללא שומן, saGS ב-0.1 מ"ג/מ"ל ברשתות רשת נחושת ללא שומן, saGS ב-0.1 מ"ג/מ"ל ברשתות זהב-רשת עם שומן שלא התייבש מעולם, ו-saGS ב-0.1 מ"ג/מ"ל ברשתות זהב-רשת עם שומן מיובש במשך שבוע לפני ההידרציה. רשתות ליפידים הציגו צפיפות חלקיקים גבוהה יותר, עם ממוצע של 40 או 46 חלקיקים למיקרוגרף (N = 12), בהשוואה לרשתות שאינן ליפידים שהוכנו באותו ריכוז חלבון, שממוצע 2 חלקיקים למיקרוגרף (N = 12). ממצאים אלו הראו אפקט ריכוז ברור יחסית לרשתות TEM לא מותאמות, ואישרו כי שכבת השומן המונולידית של 20% Ni-NTA נשארה שלמה. למרות שעדיין נצפתה ערימת חלקיקים, חלקיקים על רשתות ליפידים הראו חפיפה מינימלית ונשארו במישור מוקד דומה. לעומת זאת, חלקיקים על רשתות לא-שומנים הופיעו בעומקי מוקד שונים באופן מהות, כאשר חלקיקים מצטברים נצפו בריכוז גבוה יותר של 1 מ"ג/מ"ל.
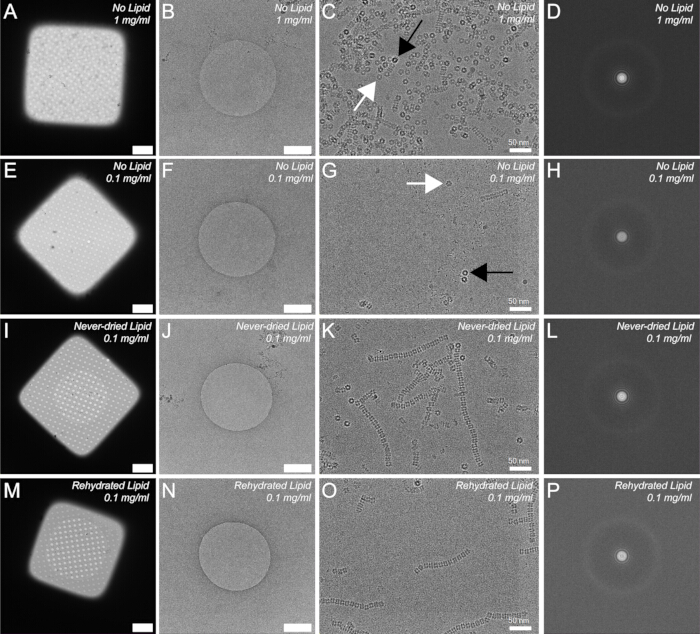
איור 7: תמונות Cryo-TEM של saGS עם תיוג פוליהיסטידין מוערמים על רשתות שומן של 20% Ni-NTA וללא שומנים. (A–D) רשת לא-שונית, שהוכנה עם saGS ב-1.0 מ"ג/מ"ל, מוצגת בהגדלה נמוכה (A), ביניים (B) וגבוהה (C), עם FFT (D). (E–H) רשת ללא שומנים שהוכן עם saGS ב-0.1 mg/mL. (I–L) רשת שומנים שלא יובשה מעולם הוכנה עם saGS ב-0.1 מ"ג/מ"ל.
(M–P) רשת שומנים מיובשת עם saGS ב-0.1 מ"ג/מ"ל. צפיפות החלקיקים ברשתות שאינן שומנים הייתה נמוכה מזו שנצפתה ברשתות זיקה ליפידית מתאימה, עם ממוצע של 2 חלקיקים למיקרוגרף לעומת 46 ו-47 חלקיקים למיקרוגרף, בהתאמה (N = 12). חצים שחורים מעידים על חלקיקים מטושטשים מאוד. חצים לבנים מצביעים על חלקיקים בקרבת מוקד. פסי קנה מידה: 10 מיקרון, 500 ננומטר ו-50 ננומטר. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
בניסוי השלישי, רשתות השומנים נחשפו ל-N-dodecyl-β-D-maltoside (DDM). דגימה שימשה saGS מטוהר ב-0.1 מ"ג/מ"ל. הדטרגנט הפריע לשכבת השומנים המונופידית. רשתות קריו של ליפידים המכילות 0.05% DDM בבופר (איור 8) הציגו פערים בשכבת הליפיד, מיצלות ליפידים על פני הרשת וצפיפות חלקיקים מופחתת יחסית לתנאי הבקרה.
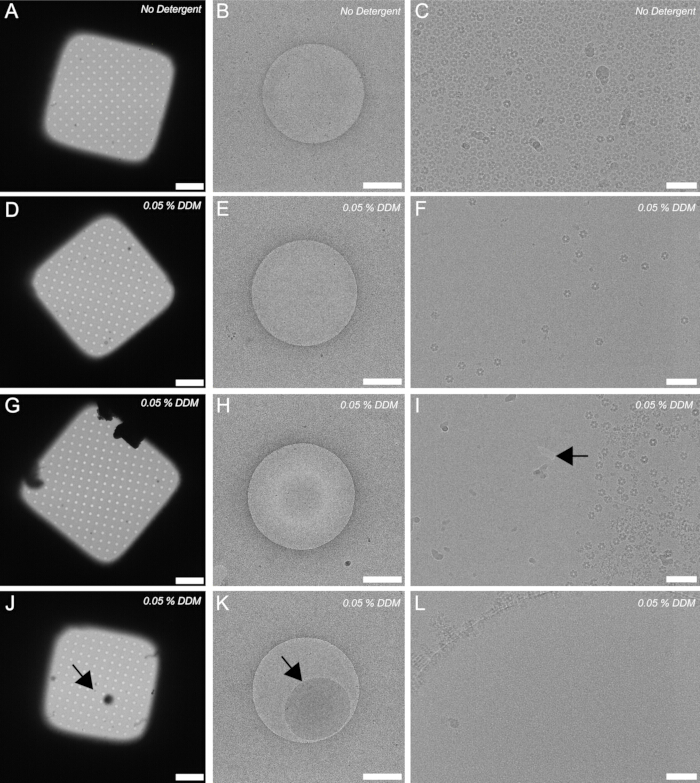
איור 8: תמונות מייצגות של 20% רשתות שומנים Ni-NTA חשופות ל-0.05% N-דודציל-β-D-מאלטוסיד (DDM). גרידי קריו צולמו בהגדלה נמוכה, בינונית וגבוהה. (A–C) תמונות של רשת זיקה לשומנים של 20% Ni-NTA שהושלכה מחדש עם בופר דילול דגימה. (D–L) תמונות של רשת זיקה לשומנים של 20% Ni-NTA שהויבשה מחדש עם בופר דילול דגימה המכיל 0.05% DDM. צפיפות חלקיקי saGS הייתה נמוכה יותר ברשתות TEM שטופלו בחומרי ניקוי. החץ בלוח I מציין חור בשכבת השומנים המונופידית. החצים בלוחות J ו-K מצביעים על אותו מיצל שומן. פסי קנה מידה: 10 מיקרון, 500 ננומטר ו-50 ננומטר. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
עובי הקרח השתנה הן בין רשתות והן בתוך ריבועי רשת בודדים. במקרים מסוימים, הקרח היה דק מדי או נעדר מחלקים של ריבוע הרשת (איור 9A), מפוזר באופן לא אחיד (איור 9B), או עבה מדי להדמיה (איור 9C). באזורים מסוימים, עובי הקרח היה קטן מקוטר קומפלקס החלבונים. אזורים יבשים או אזורים המכילים קרח דק מאוד, המוגדרים כדקים יותר מקוטר החלקיקים, יש להימנע מהם במהלך איסוף הנתונים, מכיוון שחלבונים באזורים אלו ככל הנראה עוברים דנוי. בהתבסס על ניסיון בפרוטוקול זה, כ-25%–50% מהקריו-גרידים צפויים להכיל קרח דק מספיק המתאים לאיסוף נתוני SPA במספר ריבועי רשת. עובי הקרח ניתן לאופטימיזציה על ידי התאמת זמן ההחלקה או שינוי נפח הבופר הסופי על הרשת לפני הקפאת הקרח.
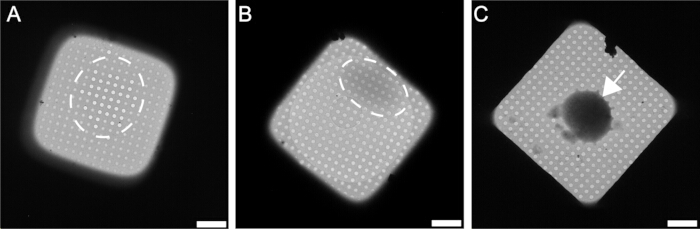
איור 9: דוגמאות לרשתות זיקה תת-אופטימליות של Ni-NTA. מיקרוגרפים קריו-TEM מייצגים של גרידי קירור עם נטיות Ni-NTA עם נטיות 20% תת-אופטימלית. (א) שכבת ליפידים נעדרת ממרכז ריבוע הרשת, המסומנת על ידי המעגל הלבן המקווקש שמקיף חורים ריקים. (B) ריבוע רשת המכיל קרח לא אחיד, עם קרח עבה יותר בקרבת האזור המסומן במעגל המקווקו הלבן. (C) ריבוע רשת המכיל קרח עבה מדי להדמיה, המסומן על ידי החץ. פסי קנה מידה: 10 מיקרון. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של האיור הזה.
כאשר מכינים אותן נכון, רשתות הזיקה מכילות שכבת שומן מונו-שכבה עם שכבה אחת בלבד של חלקיקים הנספגת על הסרט. צפיפות החלקיקים צפויה לעלות על זו שנצפתה ברשתות לא-ליפידיות שהוכנו בריכוזי דגימות דומים. כישלון בהעברת מונולייר השומן לרשת TEM יוצר רשתות קריו המכילות חורים ריקים (איור 10A) או חורים המכילים קרח זגוגית ללא שכבת שומן ומציגים מעט או ללא חלקיקים (איור 10B, C).
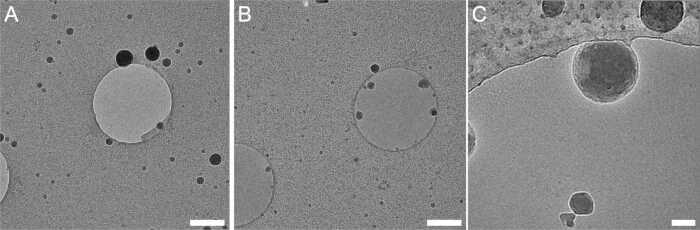
איור 10: דוגמה לרשת TEM שחסרה שכבה מונופידית. תמונות Cryo-TEM המציגות כשל העברת שכבת הליפידים על פני הרשת של TEM. נוקלאוזומים אנושיים עם סימון פוליהיסטידין נספגים על שכבת הפחמן. (א) אזור בריבוע הרשת המכיל חורים ריקים. (ב) אזורים שונים באותה רשת המכילים חורים מלאים בקרח זגוגית אך חסרים חלקיקים נראים או שכבת שומן. (ג) תמונה בהגדלה גבוהה של חור ללא שכבת שומן אך מכיל קרח זגוגי; חלקיקים נראים על שכבת התמיכה הפחמנית העבה. פסי קנה מידה: 1 מיקרומטר ו-50 ננומטר. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
קובץ משלים 1: הוראות להדפסת תלת-ממד על מחזיק הפינצטה. קובץ משלים זה מכיל הוראות מפורטות להדפסת מחזיקי פינצטה מותאמים אישית המשמשים במהלך הידרציה של רשת שומנים ודגימות דגם. אנא לחצו כאן להורדת הקובץ הזה.
קובץ משלים 2: קובץ STL להדפסת פינצטה על שולחן להדפסה בתלת-ממד. קובץ משלים זה מכיל את קובץ הסטריאוליתוגרפיה (STL) הנדרש להדפסת תלת-ממד בגרסת מחזיק הפינצטה המשמשת לדגירה של רשתות שומן הידרטיביות בתא לחות על שולחן (איור 3C, 3D). אנא לחצו כאן להורדת הקובץ הזה.
תיק משלים 3: קובץ STL להדפסת 3D עם מחזיק פינצטה קריו-פלנגר להדפסה. קובץ משלים זה מכיל את קובץ הסטריאוליתוגרפיה (STL) הנדרש להדפסת תלת-ממד בגרסת מחזיק המלקחטה, המשמשת לדגירה של רשתות שומן הידרטיביות בתא לחות קריו-פלוגר. אנא לחצו כאן להורדת הקובץ הזה.
דיון
מחקר זה מציג פרוטוקול מפורט שלב אחר שלב להכנת רשתות זיקה חד-שכבתיות ליפידי Ni-NTA ומדגיש שיקולים מעשיים חשובים ויתרונות של גישה זו לקביעת מבנה קריו-EM שגרתית של קומפלקסים חלבונים ממוססים עם תיוג פוליהיסטידין. כמה שלבים בפרוטוקול הם מאתגרים מבחינה טכנית וחשופים לטעויות משתמש, במיוחד למשתמשים בפעם הראשונה.
ניתן להשלים את שינוי שכבת הליפידים המונו-שכבתית תוך כ-2 שעות, ורשתות הליפידים שנוצרות ניתנות לייבש ואחסון לשימוש מאוחר יותר. עם שעתיים נוספות וגישה למכשיר קריו-פלומנסר, ניתן להכין לאחר מכן את הקריו-גרידים. בהתאם לכך, שיטה זו מתאימה היטב למתקנים מרובי משתמשים ולמעבדות קריו-EM. באמצעות גישה זו, נקבעו מבנים של קומפלקסים חלבונים מסיסים בטווח של 97 עד 470 kDa ברזולוציה תת-3 Å17. קישור יעיל לשכבת שומן Ni-NTA דורש רכיב עם תגית פוליהיסטידין המכיל מקשר גמיש. למרות שנצפתה מידה מסוימת של כיוון מועדף יחסית למונולייר עבור דגימות מסוימות, כולל נוקלאוזומים וגלוטמט סינתאז, כיוונים אלו לא הגבילו את הרזולוציה או הכניסו ארטיפקטים מתוחים לשחזורים הסופיים. אינטראקציה בין שכבת ליפיד Ni-NTA לחלבונים עם תיוג פוליהיסטידין מקדמת לכידת חלקיקים יעילה על פני הרשת של TEM. כתוצאה מכך, ניתן לבצע ניתוח מבני באמצעות דגימות מדוללות יחסית וצינורות עיבוד קריו-EM סטנדרטיים, כגון RELION ו-cryoSPARC, ללא שלבי הכנת דגימה נוספים.
טיפול זהיר ברשתות TEM והכנת תערובות שומנים חיוניים לתוצאות שחזוריות. מונולייר שומנים רגישים מאוד למזהמים, כולל חומרי ניקוי שאריות, שמנים ואבק. לכן, ניקוי יסודי של כל כלי הזכוכית הוא קריטי. רחצה עם סורפקטנט אניוני, ולאחר מכן שטיפה נרחבת במים אולטרה-טהורים וייבוש יסודי באוויר מומלצת בחום לפני השטיפה הבאה בכלורופורם ואתנול מיד לפני השימוש.
הפרוטוקול משתמש ברשתות TEM זהב-mesh משום שהן לא תגובתיות בטווח רחב של תנאי דגימות ובופרים. כדי להכיל דגימות שונות, ניתן לשנות את הבופרים המשמשים במהלך יציקת שומן, הידרציה מחדש ברשת שומנים, דגירה ושטיפה לפני הקפאה במים. בופרים לדוגמה המכילים גליצרול או תוספים אחרים עשויים להיות מוסרים במהלך שלב הכביסה לפני הוויטריפיקציה. יש להימנע מבאפרים המכילים דיתיותרייטול (DTT) מכיוון ש-DTT מפחית ניקל32 ומפריע לקשירה בין חלבונים מסומנים בפוליהיסטידין לבין שכבת הליפידים Ni-NTA. גם לא מומלץ להשתמש בחומרי ניקוי משום ש-0.05% N-dodecyl-β-D-maltoside (DDM) הפריע לשכבה המונופית של השומן, ודטרגנטים אחרים המשמשים בדרך כלל למחקרים מבניים של חלבון ממברנה צפויים לגרום להשפעות דומות (איור 8D–L). האם ריכוזי חומרי ניקוי נמוכים יותר או חומרי ניקוי בריכוז מיצל קריטיים נמוכים יפגעו באותה מידה בשלמות השכבה המונולרית, נותר להחליט.
החלק הטכני התובעני ביותר בפרוטוקול הוא יציקה והעברת שכבת המונופידים לרשת TEM. שלב זה רגיש מאוד לטמפרטורה, רטט וטכניקת טיפול. התוצאות האופטימליות הושגו על ידי יציקת שכבות ליפידים בטמפרטורת החדר (~22 מעלות צלזיוס) באמצעות בופר מקורר מראש. יש למזער הפרעות מכניות כי רעידות עלולות לייצב את השכבה המונולרית. בהתאם לכך, צלחת הפטרי צריכה להישאר נייחת לאחר יציקת השומן. במהלך ההעברה, שמן הקיק והשכבה המונולירית של הליפידים עשויים להגר בהדרגה על פני הבופר, מה שמעלה את הסבירות להעברת שמן קיק במקום מונולייר ליפידי (איור 5C). מילוי נכון של צלחת הפטרי ושליטה קפדנית בכיוון הרשת נחוצים כדי להבטיח העברה אחידה ומלאה של שכבת אחת. אי העברת שכבת הליפידים אל פני רשת ה-TEM יוצרת משטח רשת הידרופובי, שגורם לבופר להתגבש על פני הפחמן.
במחקר זה, רק בוכנה קריו-פומפה שהשתמש בבלוט דו-צדדי. עם זאת, שיטות הכתמה אחרות, כולל טחימה ידנית או חד-צדדית, צפויות להניב תוצאות דומות בתנאי ששכבת השומנים נשארת ללא נזק. בעת התאמת פרוטוקול זה, יש לטפל ברשתות הליפידים בדומה לרשתות TEM סטנדרטיות, עם מספר שיקולים חשובים. יש להימנע מניקוי פלזמה, ורשתות הליפידים צריכות להישאר מיובשות ברציפות לפחות 15 דקות לפני יישום הדגימה. יש לדגור דגימות על רשת הליפידים למשך מינימום של 15 דקות כדי לאפשר ספיחה על פני השטח, ויש ליצור איתה קשר עם לפחות טיפה אחת של בופר דילול לפני הבלוט כדי לנרמול נפח המאגר הסופי על פני הרשת. שמירה על הידרציה של שכבת הליפידים Ni-NTA לאורך כל הדגירה היא קריטית, שכן אידוי יכול להעלות את ריכוזי המלח המקומיים ולשנות את מבנה החלבון או ההרכבה המורכבת. זמני דגירה ארוכים יותר (>30 דקות) עשויים להגדיל את צפיפות החלקיקים ברשת, אם כי יש לאזן את הדגירה הממושכת מול פוטנציאל להידרדרות המדגם. תערובת פרופאן-אתאן נוזלית של 60:40 המתוארת בפרוטוקול זה מומלצת אך אינה הכרחית בהכרח. יחסי פרופאן-אתאן חלופיים או אתאן טהור יכולים לשמש גם הם יחד עם בוכנת קריו-פלנגר המצוידת במערכת חימום אתאן, כדי לשמור על הקריוגן במצב נוזלי לאורך כל הניסוי. לבסוף, התפלגות החלקיקים מושפעת מעובי הקרח. במקרים מסוימים, חלקיקים עשויים להיות מודרים מאזורים המכילים קרח דק במיוחד, במיוחד בקרבת מרכז ריבועי הרשת. לכן, ייתכן שיהיה צורך לאופטימיזציה של תנאי ההדבקה לכל מכשיר ויטריפיקציה. בסך הכול, רשתות זיקה חד-שכבתית של Ni-NTA מספקות אסטרטגיה איתנה ונגישה לקביעת קומפלקסים מבניים מסיסים של חלבונים מסוסים עם סימון פוליהיסטידין. באמצעות יישום זהיר של ההליך שלב אחר שלב המתואר כאן, ניתן לשלב שיטה זו בקלות בתהליכי קריו-EM סטנדרטיים.
תודות
המחברים מודים לקיילב פישר, רוב מקגינטי, ניקולס רייט, בלייק פורדייס ובריאן רות' מאוניברסיטת צפון קרוליינה בצ'אפל היל על סיפוק המנגנים ששימשו בניסויים אלו. מתקן הליבה של מתקן הקריוEM של UNC-Chapel Hill ווועדת הסנגור למתקן הליבה של UNC זוכים להכרה על תמיכה טכנית וכספית. מתקן מיקרוסקופיה ביומולקולרית לקריו-אלקטרונים במחלקה לכימיה וביוכימיה באוניברסיטת קליפורניה, סנטה קרוז (RRID: SCR_021755), מוכר על סיוע טכני. עבודה זו נתמכה על ידי המכון הלאומי לסרטן של המכון הלאומי לבריאות תחת פרס מספר P30CA016086 ועל ידי מענק R35GM150960 של המכונים הלאומיים לבריאות שהוענק לריצ'רד וו. בייקר.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1 mL volumetric flask with stopper | Avantor | 10124-382 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 1 mL |
| 2.5 µL glass syringe | Hamilton | 7632-01 | 2.5 Microliter Syringe, removable needle (RN), no needle included |
| 3.7 mL threaded glass vial with phenolic cap | Fisher Scientific | 03338A | Fisherbrand Class B clear glass threaded vial with attached closure, 3.7 mL |
| 4-slot cryo-grid box | MiTeGen | 71166-10 | Cryo Grid Box Round With Lid |
| 11.4 L plastic tub | Sterilite 12 qt dishpan, multi-purpose plastic wash tub | ||
| 25 µL glass syringe | Hamilton | 80430 | 25 Microliter Syringe, removable needle (RN), includes 22s gauge, 52 mm curved beveled needle |
| 25 mL volumetric flask with stopper | Avantor | 10123-994 | VWR Volumetric Flask, clear glass, Class A, serialized, with penny-head glass stopper, 25 mL |
| 99.5% pure ethanol | Thermo Fisher Scientific | 615090040 | Ethanol, 99.5%, ACS reagent, absolute, 200 proof |
| 99.8% pure chloroform | Fisher Scientific | AA32614K2 | Chloroform, ACS, 99.8+% |
| Aluminum foil | Walmart | Aluminum foil, 30.4 cm width | |
| Anionic surfactant powder | Fisher Scientific | 50-997-492 | Electron Microscopy Sciences Alconox anionic powder detergent, 4 lb |
| Baking dish | Walmart | Pyrex 232-D 3-quart deep glass baking dish | |
| Blot paper | Ted Pella | 47000-100 | Standard Vitrobot filter paper, Ø55/20 mm, Grade 595 |
| Bottle of castor oil with dropper | Walmart | Organic castor oil with dropper, 1 fl oz | |
| Cryo-plunger | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-Cis) PC (DOPC), 1,2-dioleoyl-sn-glycero-3-phosphocholine powder, 25 mg |
| Fine-tip tweezers | Ted Pella | 505 | DUMONT Biology Grade Tweezers, style 5, polished stainless steel |
| Glass culture tube | Fisher Scientific | 14958A | Fisherbrand disposable flint glass tube with plain end, 1 mL |
| Glass pipet | Fisher Scientific | 13-678-20A | Fisherbrand disposable borosilicate glass Pasteur pipet, 14.6 cm |
| Gold-mesh holey-carbon TEM grid | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 mesh |
| Grade 1 filter paper | Sigma-Aldrich | WHA1001150 | Whatman qualitative filter paper, Grade 1, 150 mm diameter |
| Large petri dish with cover | Fisher Scientific | 08747E | Corning PYREX reusable petri dish with cover, 150 mm diameter, 15 mm height |
| Low-lint tissues | Fisher Scientific | 06-666 | Kimtech Science Kimwipes delicate task wipers, 1-ply |
| Ni-NTA lipid | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni), 1,2-dioleoyl-sn-glycero-3-[(N-(5-amino-1-carboxypentyl)iminodiacetic acid)succinyl] (nickel salt) |
| Pipet bulb | Fisher Scientific | S32325 | Fisherbrand rubber bulb, natural, 2 mL |
| Reagent ethanol | Sigma-Aldrich | 362808-1L | Reagent alcohol ≥89% (GC), contains 5% isopropyl alcohol and 5% methyl alcohol |
| Self-closing anti-capillary tweezers | Ted Pella | 510-5 | DUMONT anti-capillary reverse tweezers, Biology Grade, style 5ACN, stainless steel |
| Self-sealing film | Fisher Scientific | S47529 | Parafilm M wrapping film, 10 cm |
| Small petri dish with cover | Fisher Scientific | 08747A | Corning PYREX reusable petri dish with cover, 60 mm diameter, 15 mm height |
| Syringe needle | Hamilton | 7803-01 | 27 gauge small-hub removable needle (RN), beveled, 75 mm length, 45° angle |
מקורות
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב