אימונו-בלוטינג ל-LC3 היא שיטה נפוצה לניטור אוטופגיה, אך היא דורשת אופטימיזציה קפדנית. פרוטוקול זה מתאר גישה חסונה לזיהוי וכימות של LC3-II בתאי סרטן הלבלב שנגזרו מ-KPC, כולל שיקולים טכניים מרכזיים וזרימת עבודה סטנדרטית לניתוח דנסיטומטרי באמצעות Fiji.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
ניתוח Western Blot של Microtubule-Associated Protein Light Chain 3 למעקב אחר דינמיקה של אוטופגוזומים בתאי סרטן הלבלב של עכבר
במאמר זה
סיכום
תקציר
לאוטופגיה תפקיד מורכב באדנוקרצינומה של תעלות הלבלב (PDAC), והיא תורמת להתקדמות הגידול, להסתגלות למצבי עקה ולהתנגדות לטיפול. לכן, הערכה מדויקת של הדינמיקה של האוטופגוזומים חיונית למחקרי ביולוגיה של סרטן. בין השיטות הזמינות, אימונובלוטינג של חלבון microtubule-associated protein light chain 3 (LC3) נמצא בשימוש נרחב לניטור הדינמיקה האוטופגוזומלית על ידי הבחנה בין הצורה הציטוזולית (LC3-I) לבין הצורה הליפידית הקשורה לאוטופגוזום (LC3-II). עם זאת, המשקל המולקולרי הנמוך של LC3 וההבדל המינימלי בניידות האלקטרופורטית בין איזופורמים אלו מציבים אתגרים טכניים הדורשים אופטימיזציה קפדנית. מוצג כאן פרוטוקול הניתן לשחזור לניתוח חצי-כמותי של רמות LC3-II באמצעות Western blot בתאי סרטן לבלב עכברי המופקים מ-KPC. השיטה כוללת תנאים אופטימליים לליזיס של תאים, אלקטרופורזה, העברת חלבונים וזיהוי מבוסס נוגדנים כדי להבטיח הפרדה וזיהוי אמינים של איזופורמי LC3. בנוסף, מסופק זרימת עבודה סטנדרטית לניתוח דנסיטומטרי של פסי LC3-II באמצעות Fiji (ImageJ). הרגישות של השיטה מודגמת באמצעות זיהוי רמות גבוהות יותר של LC3-II בתנאים של השראת אוטופגיה (טיפול ב-gemcitabine) ופגיעה בזרימה האוטופגית (VMP1 knockdown). כמו כן, נבחנים פרמטרים טכניים קריטיים המשפיעים על פרשנות הנתונים, כולל הרכב תמיסת הליזיס וספציפיות הנוגדנים, יחד עם שגיאות נפוצות בניסויים. אף על פי שאימונובלוטינג של LC3 לבדו אינו מספיק כדי להגדיר במלואן את הזרימה האוטופגית, כאשר הוא משולב עם בדיקות משלימות הוא מספק גישה חסונה ונגישה לניטור פעילות אוטופגית. ניתן להתאים את הפרוטוקול להקשרים ניסיוניים אחרים, ובכך להקל על מחקרים מכניסטיים של אוטופגיה במודלים של סרטן.
מבוא
מאקרו-אוטופגיה (להלן תהליך האוטופגיה) היא מסלול פירוק מווסת שבאמצעותו תאים מפרקים חומר ציטופלזמי, כולל חלבונים ואברונים שאינם תפקודיים. סימן היכר של האוטופגיה הוא היווצרות מבנה בעל ממבנה כפול המכונה אוטופגוזום, אשר מבודד מטען תאי ומעביר אותו לאחר מכן לליזוזומים לצורך פירוק1,2,3. בתאים רגילים, האוטופגיה תורמת למחזור מבוקר של חלבונים ואברונים, ובכך מגבילה עקה חמצונית ומפחיתה את הסיכון להתפתחות גידולים. עם זאת, בתאי סרטן, תהליך זה עשוי להיות מנוצל כדי לתמוך בהישרדות תחת תנאים של דרישה מטבולית גבוהה, מחסור בחומרי הזנה והיפוקסיה. על ידי סבסוד ההסתגלות למיקרו-סביבה עוינת, האוטופגיה תורמת גם לעמידות לכימותרפיה, בין השאר על ידי הפחתת נזק תאי הנגרם מהטיפול4,5.
סרטן הלבלב מדורג כגורם השלישי המוביל לתמותה הקשורה לסרטן בארצות הברית. כ-90% מסרטני הלבלב מסווגים כ-pancreatic ductal adenocarcinoma (PDAC). בניגוד למספרים של גידולים ממאירים אחרים, שבהם גילוי מוקדם והתקדמות טיפולית שיפרו את הישרדות המטופלים, PDAC מאובחן בשלב מתקדם ביותר מ-80% מהמקרים. הופעה בשלב מאוחר זה, בשילוב עם ביולוגיה תמורה אגרסיבית ועמידות בולטת לטיפול, מובילה לשיעור הישרדות כולל של 5 שנים של כ-11%6.
מודל העכבר KPC, המבוסס על הפעלה ספציפית ללבלב של Kras אונקוגני ומחיקה מותנית של Trp53 המונעת על ידי Cre recombinase, הוא אחד המודלים המוהנדסים גנטית הנפוצים ביותר לסרטן צינורות הלבלב (pancreatic ductal adenocarcinoma). עכברים אלו מפתחים גידוליים באופן ספונטני הדומים מאוד למחלה בבני אדם, המתקדמים מנאופלזיה תוך-אפיתלית של הלבלב (PanIN) לקרצינומה פולשנית. חשוב לציין כי מודל זה משחזר מאפיינים מרכזיים של סרטן הלבלב, כולל סטרומה דסמופלסטית צפופה ומיקרו-סביבת גידול אימונו-סופרסיבית. תאי גידול שבודדו מעכברי KPC (תאים נגזרים מ-KPC) מספקים מערכת in vitro משלימה השומרת על רבות מהמאפיינים הגנטיים והפנוטיפיים של הגידולים המקוריים, ובכך מאפשרת מחקרים מכניסטיים והערכה מבוקרת של תגובות טיפוליות7,8.
VMP1 הוא חלבון חיוני הקשור לאוטופגיה, המ memulai את תהליך האוטופגיה באמצעות אינטראקציה עם Beclin-1 וגיוס של קומפלקס PI3KC39,10. מעבר לשלב הפריסה, VMP1 משתתף בשלבים מרובים של האוטופגיה, כולל היווצרות האוטופגוזום10, סגירתו11, ותהליכים סלקטיביים כגון מיטופגיה12 וזימופגיה13. VMP1 נשאר מעורב לאורך כל שטף האוטופגיה ועשוי למלא תפקידים נוספים כ-phospholipid scramblase14. בלבלב, הביטוי של VMP1 הוא בדרך כלל נמוך, אך הוא מונחה בעוצמה בתנאי סטרס, כולל פנקרטיטיס וטרנספורמציה אונקוגנית, שבה הוא מקדם אוטופגיה במורד השרטוט של איתות KRAS מוטנטי15,16. VMP1 מובטא באופן יתר בסרטן הלבלב17, ומודלים ניסיוניים בעכברים הראו כי אוטופגיה התלויה ב-VMP1 משתפת פעולה עם KRAS כדי לקדם התחלה של גידול והיווצרות PanIN18. יתרה מכך, VMP1 תורם לעמידות לכימותרפיה, מכיוון שהעלייתו על ידי סוכנים כגון gemcitabine19 מעוררת אוטופגיה19 ותומכת בהישרדות תאי הגידול17, מה שמדגיש את תפקידו הפרו-טוריגני15.
אוטופגוזומים מאופיינים בנוכחותו של חלבון LC3 (microtubule-associated protein light chain 3) הקשור לאוטופגיה20. בתנאי בסיס, LC3 נוכח בעיקר בצורה מסיסה (LC3-I) המפוזרת ברחבי הציטופלזמה והגרעין. עם הפעלת האוטופגיה, LC3 עובר ליפידציה באמצעות הצמדה לפוספטידיל אתנולמין, מה שיוצר את הצורה הקשורה לממברנה, LC3-II1,21. למרות של-LC3-II יש משקל מולקולרי גבוה יותר מזה של LC3-I בשל שינוי זה, הוא נודר מהר יותר במהלך SDS-PAGE, ככל הנראה בשל הידרופוביות מוגברת. כתוצאה מכך, המרת LC3-I ל-LC3-II משקפת ליפידציה ולא עיבוד פרוטאולייטי, כאשר LC3-I מזוהה בדרך כלל בכ- 16 kDa ו-LC3-II בכ- 14 kDa. מכיוון שרמות LC3-II תואמות לשכיחות האוטופגוזומים, אימונו-בלוטינג של LC3 נמצא בשימוש נרחב לניטור פעילות אוטופגית22. לכן, הערכה מדויקת של דינמיקת LC3 חיונית לפרשנות של ממצאים ניסויים הקשורים לאוטופגיה.
מחקר זה מפרט את הסטנדרטיזציה והאופטימיזציה הטכנית של פרוטוקול אימונובלוטינג (immunoblot) קלאסי ל-LC3 בקו תאי סרטן הלבלב המופק מ-KPC. אופטימיזציה היא חשובה במיוחד מכיוון ש-LC3 הוא חלבון בעל משקל מולקולרי נמוך, הצורות LC3-I ו-LC3-II נבדלות רק ב-~2 kDa בניידות אלקטרופורטית, ו-LC3-II הוא מין ליפידי21,22. כתוצאה מכך, שינויים פרוצדורליים קלים עלולים לפגוע בזיהוי של LC3 ולהוביל לתוצאות לא אופטימליות. בנוסף, מקור המין של הדגימות מהווה שיקול חשוב להשגת תגובה חיסונית (immunoreactivity) אופטימלית. הפרוטוקול המותאם הוא רגיש מספיק כדי לזהות רמות מוגברות של LC3-II בעקבות טיפול בחומר הכימותרפי gemcitabine ובעקבות knockdown של VMP1, תנאים הידועים כמעוררים אוטופגיה ופוגעים בזרימה אוטופגית (autophagic flux), בהתאמה. לבסוף, שני מלכודים טכניים פוטנציאליים מודגשים כדי להראות את השפעתם על איכות הנתונים ועל פרשנות התוצאות. סקירה כללית של זרימת העבודה הניסוית זו מומחשת ב-איור 1.
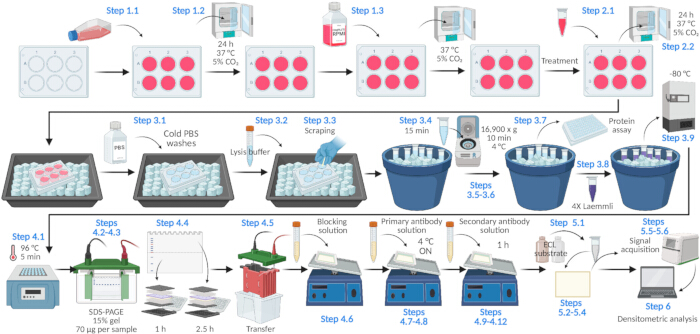
איור 1: ייצוג סכמטי של פרוטוקול אימונובלוטינג ל-LC3 בתאים המופקים מ-KPC. סקירה סכמטית של הפרוטוקול המשמש לזיהוי ולכימות רמות של LC3-II באמצעות אימונובלוטינג. תאי סרטן הלבלב המופקים מ-KPC מרובעים ועוברים טיפולים ניסיוניים, לאחר מכן מתבצע ליזיס של התאים, כימות חלבונים, SDS–PAGE, העברה לממברנה, זיהוי LC3 מבוסס נוגדנים, רכישת אות כימילומניסנטי וניתוח דנסיטומטרי של פסי LC3-II המנורמלים לבקרת העמסה. זרימת העבודה מדגישה את השלבים הפרוצדורליים העיקריים והשלבים הקריטיים הנדרשים להערכה אמינה של הדינמיקה של LC3. נוצר באמצעות BioRender.com. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
כל ההליכים שכללו בעלי חיים בוצעו בהתאם להנחיות המוסדיות ואושרו על ידי הוועדה לטיפול ושימוש בבעלי חיים (IACUC) של בית החולים הכללי של מסצ'וסטס (Massachusetts General Hospital) תחת פרוטוקול מס' 2019N000111. שורת תאי סרטן הלבלב הגזורה מ-KPC ששימשה במחקר זה הוקמה בעבר במעבדתו של Mostoslavsky תחת פרוטוקול מאושר זה. רשימת הרכיבים, הכימיקלים ומידע על הציוד מופיעה ב- טבלת חומרים.
1. הכנת תאים
- זריעת תאי גידול לבלב במעבר נמוך שנגזרו מ-KrasG12D; Trp53f/+; p48-Cre (להלן KPC) בצלחת 6 בארות במצע Roswell Park Memorial Institute (RPMI 1640) המכיל 10% fetal bovine serum, 100 U/mL penicillin ו-100 µg/mL streptomycin. התאימו את צפיפות הזריעה כדי להגיע ל-70%–90% התמזגות (confluence) ביום הליזיס.
הערה: צפיפות זריעה של 3.5 × 10⁵ תאים לבערה הניבה התמזגות של כ-80% לאחר 72 שעות. מכיוון שהצמיחה עשויה להשתנות בין מעבדות ומודלי KPC שונים, קבעו את צפיפות הזריעה האופטימלית באופן אמפירי לפני ביצוע הניסוי.
הערה: ליצירת שורות תאים עם knockdown יציב של VMP1, ייצרו חלקיקי לנטי-וירוס על ידי co-transfection של תאי HEK293T עם פלסמידי אריזה והווקטור הלנטי-וירוסי המתאים באמצעות polyethylenimine (PEI). אספו את העל-נוזלים (supernatants) הלנטי-וירוס 72 שעות לאחר הטרנספקציה, צנטריפוגו ב-300 × g למשך 10 דקות ב-4 °C כדי להסיר פסד תאי, וסננו דרך מסנן מזרק של 0.45 µm. העבירו את תאי ה-KPC סבב בודד של טרנסדוקציה עם העל-נוזלים הוירוסליים שנאספו. בצעו סלקציה לתאים שעברו טרנסדוקציה יציבה על ידי טיפול ב-2.5 µg/mL puromycin (דילול של 1:4,000 מתמיסת מלאי של 10 mg/mL) למשך 72 שעות. - גודלו את התאים ב-37 °C באינקובטור לח עם 5% פחמן דו-חמצני (CO₂).
- החליפו את המצע במצע טרי והמשיכו בדגירה תחת אותם תנאים.
2. טיפול ב-20 µM gemcitabine
- הכינו תמיסת gemcitabine בריכוז 10 mM במצע RPMI יום אחד לפני הליזיס. טפלו בכל באר באמצעות 4 µL מהתמיסה בריכוז 10 mM כדי להגיע לריכוז סופי של 20 µM.
- דגרו את התאים למשך 24 h בטמפרטורה של 37 °C באינקובטור לח עם 5% פחמן דו-חמצני (CO₂).
3. ליזטים של תאים
- הנח את הפלטה על קרח ושטוף שלוש פעמים עם תמיסת סליין בבופר פוספט (PBS; 137 mM NaCl, 2.7 mM KCl, 8 mM Na₂HPO₄, ו-2 mM KH₂PO₄).
- הוסף 80 µL של באפר ליזיס (50 mM Tris-HCl, pH 8.0, 150 mM NaCl, 1% Triton X-100, ו-0.1% SDS) בתוספת מעכבי פרוטאז.
הערה: אם נצפיתו רמות התמזגות (confluence) שונות בין בארות, יש להתאים את נפח תמיסת הליזיס כדי להשיג ריכוזי חלבון דומים. כקו מנחה, השתמשו ב-~10 µL של תחביב ליזיס עבור 10% התמזגות (למשל, 70 µL עבור 70% התכנסות (confluence) ו- 90 µL עד להגעה ל-90% התקבצות (confluence)). - באמצעות הקצה הרחב (פרוקסימלי) של טיפ עבור פיפט P200, גרדו ביסודיות את כל פני השטח של כל באר כדי לנתק ולאסוף את התאים לתוך באפר הליזה.
- אספו את הליזאט (lysate) למבחנה של מיקרוצנטריפוגה ושמרו אותו על קרח למשך 15 דקות.
- סובב את הדגימות בצנטריפוגה במהירות של 16,900 × ג' ב- 4 °C למשך 10 דקות.
- העבירו את העלייה (supernatant) למבחנה נקייה למיקרוצנטריפוגה.
- הוציאו מנה (aliquot) לצורך כימות חלבונים ושמרו אותה על קרח עד לביצוע האנליזה.
הערה: לצורך כימות חלבונים, דלל/י 2.5 µL של ליזאט ב- 7.5 µL של באפר ליזיס (lysis buffer) ונערבב עם 200 µL של ריאגנט חומצה ביצינכונינית. ניתן להשתמש גם בשיטות חלופיות לכימות חלבונים. - הוסף 4× בופר לדגימות לפי שיטת Laemmli (250 mM Tris-HCl, pH 6.8, 8% SDS, 40% גליצרין, 0.04% ברומופנול כחול, ו-20% β-מרקפטואתנול) אל הליזטים ולערבב היטב. עבור 77.5 µL מהליזט, הוסף 25.8 µL של תמיסת דגימה של Laemmli.
- אחסן את הדגימות בטמפרטורה של −80 °C.
הערה: ניתן להשהות את הפרוטוקול בשלב זה. ניתן לאחסן דגימות בטמפרטורה של −80 °C עד לשבועיים לפני SDS–PAGE.
4. SDS–PAGE ו-Western blot
- חמם את הדגימות בטמפרטורה של 96 °C למשך 5 דקות.
- טעינה 70 µg מכל דגימה על ג'ל SDS-PAGE בריכוז 15% (בעובי 1.5 מ"מ) והריצו אלקטרופורזה במתח של 90 V עד שחזית הצבע תיכנס לג'ל המפריד (resolving gel). השתמשו בג'ל מפריד מפוליאקרילאמיד בריכוז 15% שהוכן באופן עצמאי, המכיל 15% אקרילאמיד/ביס-אקרילאמיד, 375 mM Tris-HCl (pH 8.8) ו-0.1% SDS.
- העלו את המתח ל-120 V והמשיכו באלקטרופורזה עד שחזית הצבע תגיע לתחתית הג'ל או תחרוג ממנה. עצרו את ההרצה לפני שסמן ה-10 kDa של סולם המשקל המולקולרי חורג מהג'ל.
- חתכו את הג'ל בערך ב-25 kDa כדי להפריד בין החלק העליון לחלק התחתון.
- העבירו חלבונים ל- 0.2 µm ממברנת PVDF שהופעלה מראש עם מתנול בתוך באפר העברה (25 mM Tris base, 192 mM glycine ו-20% [v/v] מתנול) בזרם של 200 mA למשך שעה אחת עבור החלק התחתון של הג'ל (<25 kDa) ו-2.5 שעות עבור החלק העליון של הג'ל (>25 kDa).
- חסמו את הממברנה למשך שעה אחת בבופר חסימה (blocking buffer) תוך כדי ערבול עדין.
- הכינו תמיסה בדילול 1:1,000 של נוגדן ראשוני נגד LC3 בתוך באפר חסימה (blocking buffer) המכיל 0.1% Tween-20.
הערה: הנוגדן הראשוני anti-LC3 שימש בדילול של 1:1,000, והנוגדן לבקרת טעינה anti-actin שימש בדילול של 1:4,000. - הדgridגרו את הממברנה למשך לילה ב- 4 °C עם נוגדן ראשוני נגד LC3 תחת ערבוב עדין.
- שטפו את הממברנה ארבע פעמים למשך 5 דקות עם TBS-T (0.1% Tween-20 ב-TBS; 20 mM Tris-HCl, pH 7.6, ו-150 mM NaCl).
- הכינו תמיסה בדילול של 1:2,000 של נוגדן משני אנטי-ארנב המשורשר ל-horseradish peroxidase בתוך תמיסת חסימה.
- הדגרירו את הממברנה עם נוגדן שני למשך שעה אחת בטמפרטורת החדר, תחת ערבוב עדין.
- שטפו את הממברנה ארבע פעמים למשך 5 דקות עם TBS-T.
- שטוף את הממברנה פעמיים עם TBS.
5. גילוי כימילומננסנטי
- הכינו את התסבסב (substrate) להגברת כימילומינצנציה דו-רכיבי על ידי ערבוב נפחים שווים של Reagent A (תמיסת לומינול/מעכב) ו-Reagent B (תמיסת פרוקסיד) מיד לפני השימוש.
- ספגו בעדינות נוזלים עודפים מהממברנה באמצעות נייר ספיגה למעבדה.
- הניחו את הממברנה בתוך קופסה אטומה לאור.
- הוסיפו את תמיסת הכימילומינצנציה המוגברת לממברנה, סגרו את הקופסה והדגירו (incubate) למשך 5 min.
- אפשרו לתמיסה העודפת להתנקז מהממברנה והניחו את הממברנה במערכת ההדמיה לזיהוי האות.
- בצעו רכישת תמונות בהתאם להוראות היצרן עבור מערכת ההדמיה.
6. ניתוח דנסיטומטרי באמצעות Fiji
- גררו והניחו את קובץ התמונה לתוך חלון ה-Fiji כדי לפתוח אותו.
- המירה של התמונה לגוון אפור של 8 ביט (Image → סוג → 8 סיביות).
- במידת הצורך, סובב את התמונה כדי ליישר את הפסים באופן אופקי (תמונה → טרנספורמציה → סובב).
- הפעל את התצוגה המקדימה (Preview) והגדר את הגריד למספר שורות מתאים (למשל, 20).
- כוון את זווית הסיבוב עד שהפסים יהיו מיושרים כראוי.
- השתמשו בכלי הבחירה המלבבי כדי להגדיר אזור עניין (ROI) סביב הנתיב הראשון, כך שייכלל רק הפס המתאים ל-LC3-II.
הערה: על הבחירה לא להיות רחבה פי שניים מגובהה. השתמשו באותם ממדי ROI עבור כל הערוצים הכלולים בניתוח. - בחר נתח → ג'לים → בחר את הנתיב הראשון.
- העבירו את אותה ה-ROI לנתיב הבא ומקמו אותה סביב הפס המתאים.
- בחר נתח → ג'לים → בחר נתיב הבא.
- חזור שלבים 6.6 ו- 6.7 עד לבחירת הנתיב האחרון.
- ייצור פרופילי עוצמה (ניתוח → ג'לים → נתיבי תרשים).
- השתמשו בכלי הקו הישר (straight-line tool) כדי להגדיר את קו הבסיס של כל שיא, וכמתו את עוצמת הפס באמצעות כלי המטה (wand tool).
- נרמלו את הערכים לבקרת העמסה (loading control).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
פרוטוקול זה מתאר ביצוע Western blotting למעקב אחר הדינמיקה של LC3 בשורת תאי סרטן לבלב ממקור KPC תחת תנאים ניסיוניים שונים. הפרוטוקול מייצר תמונות כימילומנסיות של LC3 ובקרת העמסה. במחקר זה, actin שימש כבקרת ההעמסה.
שני יישומים מייצגים של הפרוטוקול מוצגים כאן. ראשית, תאי KPC של ביקורת הושוו לתאי KPC שטופלו ב-gemcitabine. Gemcitabine הוא סוכן כימותרפויטי שדווח בעבר כי הוא משרה אוטופגיה בתאי סרטן הלבלב19. איור 2A מציג אימונובלוט מייצג של LC3, כ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
מאמר זה מתאר את האופטימיזציה הטכנית והסטנדרטיזציה של פרוטוקול immunoblotting קלאסי עבור LC3 בתאי סרטן לבלב ממקור KPC. בהינתן התפקיד המוכר יותר ויותר של אוטופגיה וחלבונים הקשורים לאוטופגיה בהתפתחות ובהתקדמות של סרטן הלבלב23, זרימת עבודה סטנדרטית זו מספקת גישה מהימנה לניטור הדינמיקה של LC3. ניתן להשתמש בפרוטוקול כדי להעריך את מאגר האוטופגוזומים תחת מגוון תנאים ניסיוניים, כולל כימותרפיה, עקה חמצונית, היפוקסיה, עקת רשתית פנימית (endoplasmic reticulum stress), ומניפולציות גנטיות כגון ביטוי יתר של גן, k...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים כי אין ניגודי עניינים.
תודות
העבודה הזו נתמכת על ידי מנות מחקר של המועצה הלאומית למחקר מדעי וטכני (CONICET) [PIP 2021–2023 GI-11220200101549CO], הסוכנות הלאומית לקידום מחקר, פיתוח טכנולוגי וחדשנות (Agencia I+D+i) [PICT-2021-I-A-00328], אוניברסיטת בואנוס איירס [UBACyT 2023–2025, 20020220300232BA], והקרן נורברטו קירו, עיר בואנוס איירס.
The authors gratefully acknowledge The Company of Biologists for financial support through a Traveling Fellowship awarded by Disease Models & Mechanisms. This support contributed to the work arising from the funded visit. Further information about the charity is available at https://www.biologists.com/.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| סורק C-DiGit Blot | LI-COR BioScience | 3600 | משמש לגילוי כימולומינסנטי בשלב 5.6 |
| מלח PBS (פוספט בופר סלין) 10x | Corning | 46-013-CM | משמש להכנת 1x PBS סטרילי לשטיפת תאים לפני העברה (passaging) בשלב 1.1. |
| 2-מרקפטואתנול (β-mercaptoethanol) | Sigma-Aldrich (Merck) | M3148 | משמש להכנת בופר דגימות Laemmli 4× להכנת דגימות SDS-PAGE בשלב 3.8. |
| שייקר תלת-ממדי (3D Shaker) | DLAB | SK-D1807-E | משמש לדגירה של ממברנות בתמיסות חסימה, נוגדן ראשוני ונוגדן שניוני, וכן במהלך שלבי שטיפה (שלבים 4.6, 4.8, 4.9, 4.11, 4.12 ו-4.13). |
| צלחת תרבית תאים בעלת 6 באריים | SORFA | SCP-11-006 | משמשת לזריעת תאים בשלב 1.1. |
| אקרילאמיד | Sigma-Aldrich (Merck) | A8887 | משמש להכנת ג'ל SDS-PAGE בריכוז 15% הדרוש לשלבים 4.2–4.5. |
| Anti-Glyceraldehyde-3-Phosphate Dehydrogenase, מונוקלונאלי לעכבר, clone 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 תגובתיות: אדם, חתול, חזיר, עכבר, ארנב, דג, כלב, חולדה. משמש כבקרת טעינה להערכת יעילות ה-knockdown (איורים 2C ו-2D). |
| נוגדן Anti-mouse IgG, מקושר ל-HRP | Cell Signaling Technology | 7076 | RRID: AB_330924. משמש להכנת תמיסת הנוגדן השניוני בשלב 4.10. |
| נוגדן Anti-rabbit IgG, מקושר ל-HRP | Cell Signaling Technology | 7074 | RRID: AB_2099233. משמש להכנת תמיסת הנוגדן השניוני בשלב 4.10. |
| נוגדן Anti-β-Actin (ACTB) מונוקלונאלי לעכבר, AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 תגובתיות: כבש, דג קרפיון, חתול, תרנגולת, חולדה, עכבר, Hirudo medicinalis, ארנב, כלב, חזיר, אדם, בקר, חזיר גינאה. משמש כבקרת טעינה באיורים 2A, 2B, 2E, 2F, 2G ו-2H. |
| ברומופנול כחול (Bromophenol blue) | Sigma-Aldrich (Merck) | B0126 | משמש להכנת בופר דגימות Laemmli 4× להכנת דגימות SDS-PAGE בשלב 3.8. |
| אתילנדיאמין טטרה חומצה (EDTA) | Sigma-Aldrich (Merck) | E9884 | משמש להכנת בופר ליזיס בעל ריכוז דטרגנט נמוך (איורים 2G ו-2H). |
| סרום בקר עוברי (Fetal Bovine Serum) | NATOCOR | Lintc-634 | משמש להכנת מצע מלא לגידול תאים (שלבים 1 ו-2). |
| Fiji | תוכנה בקוד פתוח | N/A | תוכנה לניתוח תמונות |
| גליצרין | Sigma-Aldrich (Merck) | G5516 | משמש להכנת בופר דגימות Laemmli 4× להכנת דגימות SDS-PAGE בשלב 3.8. |
| גליצין | Sigma-Aldrich (Merck) | G7126 | משמש להכנת בופר העברה לשלב 4.5. |
| ממברנת Immun-Blot PVDF, גליל, 0.2 µm, 26 cm x 3.3 m | Bio-Rad | 1620177 | משמש להעברה בשלב 4.5. |
| בופר חסימה Intercept (TBS) | LI-COR BioScience | 927-60001 | משמש לחסימה בשלב 4.6, ולהכנת תמיסות נוגדן ראשוני ושניוני בשלבים 4.7 ו-4.10. |
| נוגדן LC3 A/B (D3U4C) מונוקלונאלי לארנב | Cell Signaling Technology | 12741 | RRID: AB_2617131 תגובתיות: אדם, עכבר, ארנב. משמש להכנת תמיסת הנוגדן הראשוני בשלב 4.7. |
| נוגדן LC3B (D11) מונוקלונאלי לארנב | Cell Signaling Technology | 3868S | RRID: AB_2137707 תגובתיות: אדם. משמש כנוגדן ראשוני ל-LC3 באיור 2H. |
| מתנול | Anedra | 6197 | משמש להפעלת ממברנת PVDF ולהכנת בופר העברה בשלב 4.5. |
| יחידת מסנן מזרקה Millex-HV, 0.45 μm PVDF | Merck Millipore | SLHV033RS | משמש לסינון מצע המכיל לנטי-וירוס (שלב 1.1). |
| בן דריי (dry bath) דיגיטלי מיני | Labnet International, Inc. | D 5060075 | משמש לחימום דגימות בשלב 4.1. |
| מערכת אלקטרופורזה Mini-PROTEAN Tetra | Bio-Rad | 1658025FC | משמשת ל-SDS-PAGE ולהעברה בשלבים 4.2, 4.3 ו-4.5. |
| MISSION shRNA המכוון ל-Vmp1 של עכבר (TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | משמש ליצירת שורות תאים יציבות עם knockdown של VMP1 (שלב 1.1). |
| N,N'-Methylenebisacrylamide (Bis-acrylamide) | Sigma-Aldrich (Merck) | M7279 | משמש להכנת ג'ל SDS-PAGE בריכוז 15% הדרוש לשלבים 4.2–4.5. |
| Nabigem 1g Gemcitabine | Microsules Argentina | M3060584-3 | משמש לטיפול בגמציטבין בשלב 2. |
| תמיסת Pen-Strep | Sartorius | 03-031-1B | משמשת להכנת מצע מלא לגידול תאים (שלבים 1 ו-2). |
| ערכה למדידת חלבון Pierce BCA Protein Assay Kit | Thermo Fisher Scientific | 23227 | משמשת לכמות חלבון (שלב 3.7). |
| טבליות מעכבי פרוטאז של Pierce | Thermo Fisher Scientific | A32953 | משמשות להכנת בופר ליזיס בשלב 3.2. |
| Polyethylenimine HCl MAX, Linear (PEI MAX), MW 40,000 | Polysciences | 24765-1 | משמש לטרנספקציה עם פלסמידים לנטי-וירוס (שלב 1.1). |
| אשלגן כלוריד (KCl) | Sigma-Aldrich (Merck) | P9333 | משמש להכנת PBS בשלב 3.1. |
| אשלגן פוספט מונובסי (KH2PO4) | Sigma-Aldrich (Merck) | P5655 | משמש להכנת PBS בשלב 3.1. |
| ספק כוח PowerPac Basic | Bio-Rad | 1645050 | משמש ל-SDS-PAGE ולהעברה בשלבים 4.2, 4.3 ו-4.5. |
| סולם חלבונים צבוע מראש (Prestained ProteinLadder) | Genbiotech | PM201 | משמש ל-SDS-PAGE בשלבים 4.2 - 4.4. |
| פיומיצין (תמיסה בריכוז 10 mg/mL) | InvivoGen | ant-pr-1 | משמש לבחירת תאים שעברו טרנסדוקציה יציבה (שלב 1.1). |
| RPMI 1640 | Genbiotech | MC2012L | משמש להכנת מצע מלא לגידול תאים (שלבים 1 ו-2). |
| נתרן כלוריד (NaCl) | Sigma-Aldrich (Merck) | S9888 | משמש להכנת PBS בשלב 3.1, בופרי ליזיס בשלב 3.2, ו-TBS בשלב 4.9. |
| נתרן דודציל סולפט (SDS) | Sigma-Aldrich (Merck) | L3771 | משמש להכנת בופר ליזיס בשלב 3.2 וג'ל SDS-PAGE בריכוז 15% הדרוש לשלבים 4.2–4.5. |
| נתרן פלואוריד (NaF) | Sigma-Aldrich (Merck) | S7920 | משמש להכנת בופר ליזיס בעל ריכוז דטרגנט נמוך (איורים 2G ו-2H). |
| נתרן פוספט דיבסי (Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | משמש להכנת PBS בשלב 3.1. |
| צנטריפוגה Sorval ST 16R | Thermo Fisher Scientific | 75004380 | משמשת לצנטריפוגציה של תאים בשלב 1.1 ושל ליזיס בשלב 3.5. |
| מצע כימולומינסנטי SuperSignal West Pico PLUS | Thermo Fisher Scientific | 34577 | משמש לגילוי כימולומינסנטי בשלב 5.1. |
| מCבטיחות ביולוגית Thermo Scientific 1300 Series A2 Class II, Type A2 | Thermo Fisher Scientific | 1386 | משמש לטיפול סטרילי בתרביות תאים בשלבים 1.1, 1.3 ו-2.1. |
| אינקובטור CO2 Thermo Scientific BB 150 | Thermo Fisher Scientific | BB150-2TCS-L | משמש לגידול תאים בשלבים 1.2 ו-2.2. |
| נוגדן TMEM49/VMP1 (D1Y3E) מונוקלונאלי לארנב | Cell Signaling Technology | 12929 | RRID: AB_2714018 תגובתיות: אדם, עכבר, חולדה. משמש כנוגדן ראשוני לאימות יעילות ה-knockdown של VMP1 באיורים 2C ו-2D. |
| Tris base | Sigma-Aldrich (Merck) | T1503 | משמש להכנת בופר העברה לשלב 4.5. |
| Tris hydrochloride (Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | משמש להכנת בופרי ליזיס בשלב 3.2, בופר דגימות Laemmli 4× בשלב 3.8, ג'ל SDS-PAGE בריכוז 15% הדרוש לשלבים 4.2–4.5, ו-TBS בשלב 4.9. |
| Triton X-100 | Sigma-Aldrich (Merck) | T8787 | משמש להכנת בופרי ליזיס בשלב 3.2. |
| Trypsin EDTA | Gibco | 11570626 | משמש להעברת תאים (passaging) בשלב 1.1. |
מקורות
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב