מסגרת רב-שלבית מעוגנת גנטית, המשלבת רנדומיזציה מנדלית, טרנסקריפטומיקה של גידולים ואנליזות של תא בודד, תיעדב את MAP1LC3A כגן הקשור לפרופטוזיס המקושר לרגישות לגליובלסטומה וכמועמד לאימות ניסיוני עתידי.
מאמר מחקר
ראיות גנטיות, טרנסקריפטומיות וחד-תאיות רב-שלביות מתעדפות את MAP1LC3A מבין הגנים הקשורים לפרופטוזיס בגליובלסטומה
34 צפיות
⸱
11 בספטמבר 2026
* These authors contributed equally
במאמר זה
סיכום
תקציר
גליובלסטומה (GBM) נותרת גידול ממאיר אגרסיבי ביותר, והתרומה של גנים הקשורים לפרופטוזיס (ferroptosis) לרגישות למחלה עדיין אינה מובנת במלואה. מסגרת רב-שלבית מעוגנת גנטית יושמה כדי לתעדף גנים הקשורים לפרופטוזיס המשויכים ל-GBM. מבין 483 גנים שנאספו מ-FerrDb V2, ל-315 היו loci של תכונות כמותיות של ביטוי cis (cis-eQTLs) מועמדים ב-eQTLGen, 250 שמרו על לפחות שלושה מכשירים עצמאיים לאחר קיבץ של חוסר שיווי משקל קישור (linkage disequilibrium clumping), ו-226 הניבו הערכות רנדומיזציה מנדלית (Mendelian randomization) תקפות המשוקללות לפי השתלבות השונות ההפוכה (IVW), תוך שימוש במחקר איגום גנומי (GWAS) של GBM שכלל 6,183 מקרים ו-18,169 ביקורות. שלושים ואחד גנים עמדו בקריטריוני הגילוי הראשוניים של P < 0.05 ושיעור גילוי שגוי של Benjamini–Hochberg (BH-FDR) < 0.20, עם הערכות רנדומיזציה מנדלית שקולה בייסיאנית (BWMR) תואמות כיוונית. רנדומיזציה מנדלית בשלב השחזור באמצעות cis-eQTLs של דם מלא מ-GTEx V10 תמכה בארבעה גנים: ATG7, RPTOR, MAP1LC3A, ו-CHMP6. הערכה בשלוש קהלות טרנסקריפטומיות עצמאיות של גידול מול ביקורת הדגימה כי MAP1LC3A היה בעל ביטוי מופחת באופן עקבי ברקמת הגידול והראה הערכה מאוחדת של השפעות רנדומליות משמעותית (log₂ fold change, −1.273; 95% confidence interval, −1.625 to −0.920; false discovery rate = 0.016), בעוד ששלושת הגנים האחרים חסרו תמיכה סטטיסטית דומה בין הקהלות. ניתוח knockout וירטואלי של תאים בודדים בוצע לאחר מכן בתת-קבוצה מאוזנת של מטופלים הכוללת 2,400 תאים ממאירים שנבחרו מתוך 4,916 תאים מתאימים מ-20 גידולי GBM בוגרים מסוג IDH-wild-type. בחמישה ריצות עם זריעה עצמאית, זוהו 3, 15, 4, ו-7 גנים חזקים במורד המסלול עבור ATG7, RPTOR, MAP1LC3A, ו-CHMP6, בהתאמה. קבוצות ההסכמה שהתקבלו כללו 17 גנים ייחודיים, כאשר RND3 היה משותף לכל ארבעת היעדים. ניתוח Gene Ontology הצביע על העשרה של תהליכי הידבקות תאים ותהליכים על פני השטח של התא, בעוד ששום מסלול KEGG או Reactome לא נותר משמעותי לאחר תיקון לבדיקות מרובות. יחד, ממצאים אלו מתעדפים את MAP1LC3A לחקירה ניסויית עתידית, תוך הבחנה בין שיוך גנטי, הלימה של ביטוי בגידול והפרעה חישובית לבין הוכחה חלוטה לקוזליות או למנגנון.
מבוא
גליובלסטומה (GBM) נותרת דוגמה מייצגת לממאירות העמידה לטיפול. למרות סיווג מולקולרי מדויק יותר ויותר וטיפול רב-תחומי, השיפורים העמידים בתוצאות הטיפול בחולים היו מוגבלים1. עבור חולים בכושר רפואי תקין, הניהול הנוכחי כולל כריתה מקסימלית בטוחה, ולאחריה רדיותרפיה עם טיפול נלווה ומשלים ב-temozolomide, משטר טיפולים שנקבע בניסוי אקראי מכריע ונשמר בהנחיות הקליניות העכשוויות1,2. עם זאת, חדירה נרחבת והטרוגניות תאית ומולקולרית רחבה מגבילות את השליטה העמידה במחלה, ורוב החולים חווים בסופו של דבר התקדמות או חזרה של המחלה, שביחס אליהם לא קיים טיפול סטנדרטי יעיל באופן אוניברסלי1,3. פער מתמיד זה בין ההתקדמות באפיון המחלה לבין התוצאות הקליניות מדגיש את הצורך לזהות תלויות מולקולריות רלוונטיות ביולוגית שעשויות להוביל לאסטרטגיות טיפוליות חדשניות עבור GBM.
פרופטוזיס (Ferroptosis) היא צורה של מוות תאי מ 의해-מבוקר התלויה בברזל, המאופיינת בפרוקסידציה בלתי נשלטת של פוספוליפידים ובכישלון של מערכות ההגנה האנטי-חמצוניות התאיות, דבר המבדיל אותה מבחינה מכנית מאפופטוזיס ומתוכניות מוות תאי קנוניות אחרות4,5. תהליך זה רלוונטי במיוחד ל-GBM, שבו שינויים גנטיים ופלסטיות מטבולית מעצבים מחדש את הומיאוסטזיס הברזל, את מאזן החמצון-חיזור (redox balance) ואת מטבוליזם הליפידים. פרופילינג גנומי וליפידומי משולב הדגימו כי מחיקת CDKN2A גורמת להפצה מחדש של חומצות שומן רב-בלתי רוויות הניתנות לחמצון, ובכך יוצרת רגישות לפרופטוזיס התלויה לגנוטיפ במודלים של GBM6. באופן דומה, ניתוחים זוגיים של גידולים ראשוניים וחוזרים זיהו שינויים הקשורים להישחלה ב-GPX4, ACSL4 ורגולטורים אחרים של פרופטוזיס7. נמצא גם כי מודולציה ניסויית של נתיבי הגנה מפני פרופטוזיס משפיעה על התגובה לטמוזולומיד בתאי GBM ובמודלים של קסנוגרפט8. יחד, ממצאים אלו מזהים את הפרופטוזיס כפגיעות טיפולית סבירה ביולוגית ב-GBM. עם זאת, הם משקפים בעיקר קשרים למצב הגידול או תצפיות ניסיוניות תלויות-הקשר, ואינם קובעים האם וריאציה קונסטיטוטיבית בביטוי של גנים הקשורים לפרופטוזיס תורמת לרגישות תורשתית ל-GBM.
מרבית המחקרים בבני אדם שבחנו פרופטוזיס (ferroptosis) בגליומה התבססו על ביטוי דיפרנציאלי, מודלים של הישרדות ואנליזות של סיווג מולקולרי תוך שימוש במאגרי נתונים של TCGA, CGGA ו-GEO9,10. למרות שמחקרים אלו ביססו את הרלוונטיות הפרוגנוסטית של תוכניות שעתוק הקשורות לפרופטוזיס, העיצוב התצפיתי שלהם אינו יכול לקבוע האם ביטוי גנים משתנה תורם לרגישות ל-GBM או שמא הוא מייצג תוצאה של התפתחות הגידול. רנדומיזציה מנדלית ברחבי התסריפטום זיהתה לאחר מכן גנים המוסדרים גנטית ותלויים ברקמה הקשורים לסיכון לגליאומה, בעוד שמחקרים עדכניים יותר המבוססים על לוקוסים של תכונות כמותיות של ביטוי (eQTL) וחלבונים (pQTL) החלו לתעדף מטרות טיפוליות פוטנציאליות עבור GBM11,12. עם זאת, מחקרים קודמים אימצו בדרך כלל גישות רחבות של תסריפטום או גישות מוכוונות למטרות תרופתיות, במקום להעריך סט מקיף ומוגדר מראש של גנים הקשורים לפרופטוזיס. יתרה מכך, מעט מחקרים שילבו מחקר אסוציאציה גנומי רחב (GWAS) גדול ב-GBM עם רנדומיזציה מנדלית בשלב השחזור תוך שימוש במשאב eQTL עצמאי, ולאחריו הערכה על פני מספר קהלות תסריפטומיות של גידול מול ביקורת. הבחנה זו חשובה מכיוון שהבקרה הגנטית של ביטוי גנים משתנה משמעותית בין רקמות, ולא ניתן להניח שאסוציאציות eQTL המופקות מדם משקפות השפעות רגולטוריות בתוך גידולי מוח11,13. לפיכך, נדרשת מסגרת אינטגרטיבית המשלבת אסוציאציה גנטית, רנדומיזציה מנדלית בשלב השחזור, תסריפטומיקה של גידולים בין קהלות וחיזוי תפקודי של תא בודד המופק ממטופל, כדי לזהות גנים הקשורים לפרופטוזיס הנתמכים על ידי קווי ראיות מתכנסים למעורבותם ב-GBM.
מחקר זה בחן האם ביטוי של גנים הקשורים לפרופטוזיס (ferroptosis), המוסדר גנטית, קשור לרגישות ל-GBM. רנדומיזציה מנדלית בשלב הגילוי ובשלב השחזור שולבה עם ניתוחי ביטוי גנים בשלוש קהילות טרנסקריפטומיות עצמאיות של גידול מול ביקורת. גנים שנתמכו בשני שלבי הרנדומיזציה המנדלית הוערכו לאחר מכן בנתוני טרנסקריפטומיקה של תא בודד המופקים מחולים, תוך שימוש בהפרעה וירטואלית (virtual perturbation) כדי לאפיין תגובות שעתוק חזויות בתאים ממאירים. במקום לתעדף גנים אך ורק על בסיס חתימות ביטוי בגידול, מסגרת רב-שלבית זו מינפה תחילה וריאציות גנטיות תורשתיות ולאחר מכן העריכה דפוסי ביטוי רלוונטיים למחלה לצד פרופילים חישוביים של הפרעה ברזולוציית תא. הראיות המכנסות שהתקבלו שימשו לתעדוף של גנים הקשורים לפרופטוזיס לצורך חקירה ניסיונית עתידית ב-GBM.
פרוטוקול
מחקר זה קיבל פטור מביקורת אתית על ידי ועדת האתיקה הרפואית של בית החולים הראשון של העם בז'אוצ'ינג (מספר סימוכין B2026-08-03). המחקר השתמש בנתונים גנטיים וטרנסקריפטומיים ברמת סיכום, שנאספו רטרוספקטיבית והוסרו מהם פרטים מזהים, כולל נתוני גישה מבוקרת שאושרו על ידי ועדת גישה לנתונים מ-EGAD000010001657 ומאגרי נתונים שהתקבלו מ-GEO, eQTLGen ו-GTEx בהתאם לתנאי הגישה והשימוש הרלוונטיים להם. לא גויסו משתתפים חדשים, לא נאספו דגימות ביולוגיות ולא נעשה שימוש בנתונים ברמת משתתף המאפשרים זיהוי. אישור אתי והסכמה מדעת למחקרים המקוריים התקבלו על ידי יצרי הנתונים הרלוונטיים, והנתונים בגישה מבוקרת שימשו בהתאם להסכם הגישה לנתונים הרלוונטי.
מערך המחקר
מחקר זה השתמש במסגרת רב-שלבית כדי לתעדף גנים הקשורים ל-ferroptosis המשפיעים על הרגישות ל-glioblastoma (GBM) ולהעריך את השפעותיהם השעתוקיות הרלוונטיות למחלה (איור 1). ראשית, גנים הקשורים ל-ferroptosis שנאספו מ-FerrDb V2 הוערכו באמצעות רנדומיזציה מנדלית (MR) של שני מדגמים, תוך שימוש בנתוני cis-expression quantitative trait locus (cis-eQTL) ומחקר אסוציאציה גנומי רחב (GWAS) גדול של GBM. שיטת IVW MR (Inverse-variance weighted) שימשה כשיטת הסינון הראשית, BWMR (Bayesian weighted Mendelian randomization) סיפקה הערכה משלימה של החוסן, ומערך נתוני eQTL עצמאי שימש ל-MR בשלב השחזור. שנית, גנים שנתמכו על ידי הניתוחים הגנטיים הוערכו בשלוש קבוצות טרנסקריפטומיות עצמאיות של גידול מול ביקורת, ולאחריהם ביצוע מטא-אנליזה בין הקבוצות. שלישית, נתוני טרנסקריפטומיקה של תא בודד המופקים מחולים שימשו לביצוע הפרעה גנטית וירטואלית בתאים ממאירים ולזיהוי תגובות שעתוקיות שחזירות במורד השביל. תגובות אלו אופיינו לאחר מכן באמצעות העשרה פונקציונלית ואנליזות של רשתות משותפות. באופן כללי, הניתוחים הגנטיים תוכננו כדי לזהות גנים הקשורים לרגישות ל-GBM, בעוד שהניתוחים הטרנסקריפטומיים וניתוחי התא הבודד העריכו התאמה ביולוגית והגהירו היפותזות לאישור ניסיוני בהמשך.
מקורות נתונים
גנים הקשורים לפרופטוזיס (Ferroptosis) הופקו מ-FerrDb V2, והניבו 483 גנים ייחודיים מקודדי חלבון אנושיים לאחר הרמוניזציה של סמלי הגנים והסרת כפילויות14. סטטיסטיקות סיכום של locus של תכונה כמותית של ביטוי cis (cis-eQTL) מדם מלא מקונסורציום eQTLGen שימשו כסט נתוני החשיפה לשלב הגילוי של רנדומיזציה מנדלית (MR), בעוד שנתוני cis-eQTL מדם מלא מ-GTEx גרסה V10 שימשו כסט נתוני חשיפה עצמאי לשלב השחזור של MR11,15. קשרי תוצאה של GBM הופקו מסטטיסטיקות סיכום של מחקר אסוציאציה גנומי רחב (GWAS) בגישה מבוקרת הזמינות דרך ארכיון הגנום-פנום האירופי, הכוללות 6,183 מקרים ו-18,169 ביקורות ממוצא אירופי16. ביטוי ברמת הרקמה של גנים שתועדפו גנטית הוערך בשלוש קוהורטות עצמאיות מ-Gene Expression Omnibus (GEO): GSE196533, הכוללת 61 דגימות גליומה בדרגה 4 שהגדרות במטא-דאטה המופקד כ-GBM ותשע דגימות מוח שאינן נאו-פסטיות; GSE4290, הכוללת דגימות מוח של GBM ודגימות מוח שאינן גידולים המקורות מאפילפסיה; ו-GSE116520, הכוללת דגימות זוגיות של ליבת הגידול ורקמה סביב הגידול יחד עם ביקורות שאינן נאו-פסטיות17,18,19. נתוני Smart-seq2 המופקים מחולים מ-GSE131928 שימשו לניתוח הפרעה וירטואלית של תאים ממאירים20. מאפייני מערכי הנתונים ותפקידיהם האנליטיים המתאימים מסוכמים ב-טבלה 1. כל הניתוחים בוצעו באמצעות מערכי נתונים שנאספו בעבר ואנונימיים, שעבורם התקבלו אישור אתי והסכמה מדעת במחקרים המקוריים.
בחירת מכשור גנטי והרמוניזציה של נתונים
הכלי המועמדים הוגבלו לאזורי cis-expression quantitative trait loci (cis-eQTLs) הקשורים לביטוי גנים במובהקות רחבת-גנום (P < 5 × 10⁻8). וריאנטים קובצו (clumped) באמצעות פאנל הייחוס האירופאי של פרויקט 1000 Genomes עם סף linkage disequilibrium (LD) של r2 < 0.001 בתוך חלון של 10,000-kb. גנים שנותרו עם פחות משלושה כלים בלתי תלויים לאחר הקיבוץ הוצאו מניתוח ה-Mendelian randomization (MR) הראשוני. בהינתן מטרת הסריקה הגששית, נקבע מראש מינימום של שלושה כלים כדי לשמר גנים עם תמיכה דלילה אך חזקה של cis-eQTL, תוך התרת אומדן IVW רב-כלים. סף זה לווה לקיבוץ LD מחמיר וסינון של F-statistic; אומדנים המבוססים על שלושה או ארבעה כלים בלבד פורשו בזהירות, וניתוחי רגישות בוצעו רק כאשר הדבר היה ישים מתודולוגית. חוזק הכלי הוערך עבור כל וריאנט באמצעות ה-F statistic (F = β2/SE2), כאשר β ו-SE מייצגים את אומדן ההשפעה של ה-cis-eQTL ואת הטעות הסטנדרטית שלו, בהתאמה. וריאנטים עם F < 10 הוצאו כדי למזער הטיות של כלים חלשים21,22. מאגרי הנתונים של החשיפה והתוצאה עברו הרמוניזציה על ידי התאמת אללים של השפעה וכיווני השפעה. וריאנטים כפולים, וריאנטים שלא היו זמינים במאגר ה-GBM GWAS, ווריאנטים עם קידוד אללים שאינו תואם הוצאו. מכיוון שתדירויות של אללי השפעה לא היו זמינות עבור ה-GBM GWAS, וריאנטים פלינדרומיים עם אוריינטציית גדיל מעומבמו הוסרו במקום להיות מושכים. מאותה סיבה, לא בוצע מבחן כיווניות פורמלי של Steiger.
ניתוחי רנדומיזציה מנדלית
הקשר בין ביטוי גנים שנחזה גנטית לבין רגישות ל-GBM הוערך באמצעות רנדומיזציה מנדלית (MR) של שני דגמים. בשלב הגילוי, נכללו רק גנים עם לפחות שלושה מכשירים עצמאיים של לוקוס תכונה כמותית של ביטוי סיס (cis-eQTL), ושיטת השקלול של השונות ההפוכה (IVW) שימשה כגישה האנליטית העיקרית. הערכות האפקט דווחו כיחסי סיכויים (ORs) עם רווחי סמך (CIs) של 95% עבור כל עלייה ביחידה אחת בביטוי הגנים שנחזה גנטית. כדי להתחשב בבדיקות מרובות על פני הגנים שנבדקו, ערכי P של IVW הותאמו באמצעות פרוצדורת Benjamini–Hochberg23. גנים עם P < 0.05 ושיעור גילוי שגוי של Benjamini–Hochberg (BH-FDR) < 0.20 נשמרו כמועמדים למחקר חקירתי. סף FDR מקל יחסית זה נבחר כדי לצמצם את השמעה המוקדמת של גנים בעלי רלוונטיות פוטנציאלית במהלך שלב הגילוי; לפיכך, סטטוס המועמדות פسر בשילוב עם ניתוחים עוקבים ולא כראיה מאששת. רנדומיזציה מנדלית משוקללת בייסיאנית (BWMR) הוחלה לאחר מכן על המועמדים משלב הגילוי תוך שימוש באותם מכשירים מותאמים (harmonized instruments)24. התאמה בין תוצאות ה-IVW וה-BWMR הוערכה על בסיס המובהקות הסטטיסטית וכיוון האפקט. במקומות שבהם מספר המכשירים הזמינים התיר זאת, בוצעו מבחן Q של Cochran, מבחן ה-intercept של MR-Egger, MR-PRESSO וניתוחי leave-one-out כדי להעריך הטרוגניות, פליוטרופיה אופקית, וריאנטים חריגים משפיעים והשפעתם של פולימורפיזמים של נוקליאוטיד בודד (SNPs) בודדים22.
ביצוע של MR בשלב השחזור בוצע באמצעות נתוני cis-eQTL של דם מלא מ-GTEx V10. שיטת יחס Wald יושמה כאשר היה זמין מכשיר (instrument) בודד בלבד, בעוד ששיטת IVW שימשה עבור גנים עם שני מכשירים או יותר. שחזור הוגדר כ- P < 0.05, BH-FDR < 0.20, וכיוון השפעה העולה בקנה אחד עם האומדן התואם משלב הגילוי. מכיוון שספרה של אומדני שחזור מ-GTEx התבססו על מכשיר אחד או שניים בלבד, הם פורשו כראיה תומכת לשחזור ולא כראיה עצמאית לקוזליות.
הערכה טרנסקריפטומית בין-קוהורטלית
ארבעת הגנים שתועדפו על ידי ניתוחי רנדומיזציה מנדלית (MR) בשלבי הגילוי והשכפול נבחנו בשלוש קהלים טרנסקריפטומיים עצמאיים. עבור GSE196533, נתוני ספירה גולמיים של RNA-sequencing נותחו באמצעות DESeq225. גנים עם ספירה הנמוכה מ-10 בכל הדגימות למעט שתיים הוצאו מהניתוח, בעוד שארבעת הגנים המטרות נשמרו ללא קשר לסינון הביטוי. ביטוי דיפרנציאלי הוערך בין 61 דגימות גליומה בדרגה 4 שסומנו כ-GBM במטא-נתונים שהופקדו, לבין תשע דגימות מוח שאינן ניאופלסטיות.
עבור GSE4290, ארבעה דגימות שהיה חסר בהן אבחנה היסטופתולוגית מפורשת הוצאו מהמחקר, מה שהותיר 77 דגימות GBM ו-23 דגימות מוח שאינן גידולים. עצימויות של מערכי מיקרו-מערכים (microarray) שעברו עיבוד הועברו לטרנספורמציית log2, עברו נורמליזציית קוונטילים (quantile-normalized), ונותחו באמצעות מודלים ליניאריים של באייס אמפיריים חסונים (robust empirical Bayes linear models) שיושמו ב-limma26. כאשר מספר גששים (probes) מופים לאותו גן, נבחר הגשש בעל ממוצע הביטוי הגבוה ביותר בכל הדגימות שנכללו, ללא תלות במובהקות הביטוי הדיפרנציאלי.
GSE116520 כלל דגימות זוגיות של ליבת גידול ורקמה סביב-גידולית מ-17 חולים, יחד עם שמונה בקרים לא-ניאופלסטיים. נתוני הביטוי שהופקדו, לאחר טרנספורמציה לוגריתמית ונורמליזציה של קוונטילים, נותחו באמצעות limma. מתאמים בתוך אותו חולה בין דגימות ליבת הגידול לדגימות הסביב-גידוליות טופלו באמצעות חסימה ברמת החולה ופונקציית duplicateCorrelation. ההשוואה בין ליבת הגידול לבקרה הייתה ההשוואה שהוגדרה מראש עבור מטא-אנליזה חוצת-קוהורטות, בעוד שהשוואות סביב-גידוליות והמגמה המסודרת בקרה–סביב-גידולית–ליבת גידול הוערכו בנפרד.
יומן ייחודי למחקר2 שינויי קיפול (fold changes) וטעויות תקן אוגדו באמצעות מודל אפקטים אקראיים של נראות מקסימלית מוגבלת (restricted maximum-likelihood) עם הסקת מסקנות של Hartung–Knapp, כפי שיושם ב-metafor. הטרוגניות בין-מחקרים הוערכה באמצעות סטטיסטיקת Q של Cochran ו-I2ערכי ה-P המאוחדים עבור ארבעת הגנים המטרה הותאמו באמצעות הליך Benjamini–Hochberg. תמיכה טרנסקריפטומית חזקה הוגדרה על ידי שיעור גילוי שגוי (FDR) של מטה-אנליזה. < 0.05, מובהקות FDR ברמת העשייה (cohort-level) לפחות בשני מאגרי נתונים, וכיווני השפעה תואמים בכל שלוש העשיות.
ניתוח נוק-אאוט וירטואלי של תא בודד
נתוני Smart-seq2 ממטופלים מ-GSE131928 שימשו להערכה של ארבעת הגנים ששוחזרו ב-MR בתאים ממאירים. תאים ממאירים של מבוגרים זוהו על פי ההערות שסופקו במחקר המקורי, ומספר שווה של תאים נדגם באופן אקראי מכל מטופל מתאים כדי למזער חוסר איזון בייצוג המטופלים. ביצוע knockout וירטואלי בוצע באמצעות scTenifoldKnk וחזר על עצמו בחמישה ריצות עצמאיות. גנים עם P < 0.05 המתוקן לפי Benjamini–Hochberg בריצה בודדת נחשבו למשמעותיים. גנים במורד המסלול ששוחזרו לפחות בשלוש מתוך חמש הריצות הוגדרו כקבוצת הקונסנס הראשית, בעוד שקריטריון מחמיר יותר של ארבע מתוך חמש שימש לניתוח רגישות. תוצאות אלו פורשו כחיזויים חישוביים של הפרעה שעתוקית ולא כראיה לוויסות מולקולרי ישיר.
העשרה תפקודית וניתוח רשתות משותפות
ניתוח העשרה פונקציונלית בוצע באמצעות גנים במורד ספציפיים למטרה שזוהו באופן הדיר בלפחות שלושה מתוך חמש הרצות של knockout וירטואלי. העשרה של Gene Ontology (GO), Kyoto Encyclopedia of Genes and Genomes (KEGG) ומסלולי Reactome הוערכה באמצעות מבחני היפרגאומטריים חד-צדדיים, כאשר 1,004 הגנים שנכללו בהסקת הרשת שימשו כסט הגנים של הרקע. ערכי P הותאמו בנפרד עבור כל מאגר אנוטציות באמצעות פרוצדורת Benjamini–Hochberg, וערך P מתוקנן של < 0.05 נחשב למשמעותי סטטיסטית.
רשת דו-חלקיית (bipartite network) נבנתה כדי לייצג את הקשרים בין ארבעת יעדי הנוק-אאוט (knockout targets) לבין הגנים המשותפים שלהם במורד המסלול (downstream genes). גנים הקשורים למספר יעדים זוהו על בסיס הדרגה (degree) המשותפת שלהם, והחפיפה בין קבוצות גנים ספציפיות ליעד נמדדה באמצעות ספירות חיתוך ומדדי Jaccard. קשרי הרשת מייצגים אסוציאציות בין הפרעות חישוביות הניתנות לשחזור, ואין לפרשם כראיה לאינטראקציות מולקולריות ישירות.
ניתוח סטטיסטי ושחזור
אלא אם צוין אחרת, המבחנים הסטטיסטיים היו דו-צדדיים, והשוואות מרובות נשלטו באמצעות פרוצדורת Benjamini–Hochberg. קריטריונים לסגוליות ספציפיות לניתוח מתוארים בתתי-הפרקים המתאימים. כל הניתוחים בוצעו באמצעות R או Python. פרוצדורות אקראיות השתמשו בזרעים (seeds) שהוגדרו מראש, והקוד האנליטי, גרסאות התוכנה והגדרות הפרמטרים המפורטות נשמרו בארכיון כדי לתמוך בדבקיות (reproducibility). כל מערכי הנתונים נאספו בעבר ועברו דה-אידנטיפיקציה; אישור אתי והסכמה מדעת התקבלו במחקרים המקוריים.
תוצאות
בחירה של גנים הקשורים לפרופטוזיס וכלי גנטיים
בסך הכל התקבלו 483 גנים הקשורים ל-ferroptosis מתוך FerrDb V2 (איור 1). מתוכם, 315 גנים הותאמו למסד הנתונים eQTLGen והיו בעלי לפחות locus אחד של תכונה כמותית של ביטוי cis (cis-eQTL) מועמד. לאחר ביצוע linkage disequilibrium clumping, 250 גנים שמרו על לפחות שלושה כלים (instruments) מועמדים בלתי תלויים. בעקבות חיפוש וריאנטים של תוצאה, הרמוניזציה של אללים ובקרת איכות, 26 גנים הניבו הערכות valid inverse-variance weighted (IVW) ונכללו בניתוח ה-Mendelian randomization (MR) בשלב הגילוי (קובץ משלים 1). כל 3,578 הכלים שנשמרו בניתוח שלב הגילוי היו בעלי F statistics >10 (מינימום, 29.72; חציון, 70.76), מה שמעיד על היעדר ראיות להטיה של כלים חלשים (weak-instrument bias). מבין 34 הגנים המועמדים בשלב הגילוי, ה-F-statistic החציוני היה 67.2, עם מינימום של 29.72.
שלב הגילוי של MR מזהה גנים הקשורים לפרופטוזיס המשויכים לרגישות ל-GBM
מבין 26 הגנים שהניבו אומדני IVW תקפים, 34 עמדו בקריטריונים שנקבעו מראש לשלב הגילוי של IVW P < 0.05 ושיעור גילויים שגויים של Benjamini–Hochberg (BH-FDR) < 0.20, שכללו 19 קשרים הפוכים ו-15 קשרים חיוביים עם פגיעות ל-GBM (איור 2A). הראיות הסטטיסטיות החזקות ביותר נצפו עבור RPTOR (OR = 0.809, 95% CI 0.737–0.87; P = 7.02 × 10⁻6; BH-FDR = 0.012) ועבור PLA2G6 (OR = 1.568, 95% CI 1.281–1.920; P = 1.08 × 10⁻5; BH-FDR = 0.0012). אומדני רנדומיזציה מנדלית שקולה בייסיאנית (BWMR) היו מובהקים באופן נומינלי ותואמים כיוונית לאומדני ה-IVW עבור כל 34 הגנים המועמדים (איור 2A). מבחני חיתוך של MR-Egger לא סיפקו ראיות לפליאוטרופיה אופקית כיוונית. מבחן Q של Cochran זיהה הטרוגניות רק עבור MAP1LC3A (P = 0.043), בעוד שמבחני MR-PRESSO גלובליים לא זיהו עיוות משמעותי של ערכים חריגים בקרב 3 הגנים שניתן להערכתם. לא ניתן היה לבצע MR-PRESSO עבור SLC7A11 מכיוון שרק שלושה כלים היו זמינים (קובץ משלים 1). ניתוחי leave-one-out ספציפיים לגנים, תרשימי השוואת שיטות ותרשימי משפך עבור ארבעת הגנים ששוכפלו לאחר מכן מוצגים ב-איור משלים 1. 34 המועמדים משלב הגילוי הוערכו לאחר מכן באמצעות מערך נתוני eQTL עצמאי. מתוכם, ל-26 היו מספיק כלים ל-MR בשלב השכפול, וארבעה עמדו בקריטריוני השכפול שנקבעו מראש.
שחזור MR עצמאי תומך בארבעה מועמדים משלב הגילוי
מתוך 34 המועמדים בשלב הגילוי, ל-26 היה לפחות כלי cis-eQTL אחד כשיר בדם מלא מ-GTEx V10, והם נכללו בניתוח ה-MR שלב השחזור. שלושה עשר גנים יוצגו על ידי כלי יחיד ונותחו באמצעות יחס Wald, בעוד ששאר 13 הגנים היו בעלי שני כלים או יותר ונותחו באמצעות IVW. ארבעה גנים עמדו בקריטריוני השחזור שהוגדרו מראש של P < 0.05, BH-FDR < 0.20, וכיוון השפעה התואם להערכה משלב הגילוי (איור 2B; קובץ משלים 1).
ביטוי גבוה יותר שנחזה גנטית של ATG7 (OR = 0.523, 95% CI 0.330–0.831; P = 0.061; BH-FDR = 0.0976), RPTOR (OR = 0.718, 95% CI 0.563–0.915; P = 0.075; BH-FDR = 0.0976), ו-MAP1LC3A (OR = 0.830, 95% CI 0.717–0.959; P = 0.017; BH-FDR = 0.1012) היה קשור לרגישות מופחתת ל-GBM. לעומת זאת, ביטוי גבוה יותר שנחזה גנטית של CHMP6 היה קשור לרגישות מוגברת (OR = 1.378, 95% CI 1.032–1.838; P = 0.0295; BH-FDR = 0.1916). כיווני ההשפעה עבור כל ארבעת הגנים היו עקביים עם אלו שנצפו בניתוח של שלב הגילוי. לא זוהתה הטרוגניות מובהקת בין הגנים שעבורם ניתן היה לחשב את Cochran's Q (Supplementary File 1). מכיוון שמרבית הערכות השחזור התבסו על כלי אחד או שניים בלבד, בדיקות פורמליות של פליוטרופיה אופקית ועיוות חריג היו ישימות רק עבור תת-קבוצה מוגבלת של גנים (Supplementary File 1). תרשימי אבחון תואמים עבור MAP1LC3A, RPTOR, ו-CHMP6 מוצגים ב-Supplementary Figure 2. ATG7 לא היה כשיר לניתוחי אבחון רב-כלים מכיוון שהערכת השחזור שלו נגזרה מיחס Wald של כלי יחיד.
הערכה טרנסקריפטומית חוצת-קוהורטים נותנת עדיפות ל-MAP1LC3A
ארבעת הגנים שנתמכו הן על ידי ניתוחי ה-MR בשלב הגילוי והן בשלב השחזור נבחנו בשלוש קהלות טרנסקריפטומיות בלתי תלויות המייצגות פלטפורמות ביטוי שונות (איור 3; טבלה 2; איור משלים 3; קובץ משלים 1). ביטוי של MAP1LC3A היה מופחת באופן עקבי ברקמת גידול בכל שלוש הקהלות: GSE19653 (log₂FC = −1.53, FDR רחב-טרנסקריפטום = 3.21 × 10⁻8), GSE4290 (log₂FC = −1.243, FDR = 3.5 × 10⁻12), ובליבת הגידול של GSE16520 לעומת ביקורת לא-נאופלסטית (log₂FC = −1.204, FDR = 9.78 × 10⁻8). ב-GSE16520, ביטוי של MAP1LC3A היה נמוך יותר גם ברקמה פרי-גידולית מאשר בביקורות לא-נאופלסטיות (log₂FC = −1.056, FDR = 2.85 × 10⁻6), עם מגמת ירידה משמעותית מהביקורת, דרך הרקמה הפרי-גידולית ועד לליבת הגידול (מקדם מגמה = −0.531, FDR = 8.59 × 10⁻6).
מטא-אנליזה של אפקטים אקראיים (Random-effects meta-analysis) איששה ביטוי נמוך באופן מובהק של MAP1LC3A ברקמת גידול (pooled log₂FC = −1.273, 95% CI −1.625 to −0.920; Hartung–Knapp P = 0.041; BH-FDR = 0.016), ללא עדות להטרוגניות בין המחקרים (I2 = 0%; Supplementary File 1). ביטוי RPTOR היה נמוך באופן עקבי בכל שלוש הקוהורטות והגיע למובהקות ברמת הטרנסקריפטום ב-GSE4290, אם כי האומדן המאוחד שלו לא היה מובהק סטטיסטית (log₂FC = −0.258, 95% CI −0.65 to 0.139; BH-FDR = 0.196; I2 = 42.3%). ביטוי CHMP6 היה גבוה באופן עקבי ברקמת גידול והגיע למובהקות ב-GSE4290, בעוד שהאומדן המאוחד נותר לא מובהק (log₂FC = 0.150, 95% CI −0.130 to 0.431; BH-FDR = 0.196; I2 = 52.0%). ATG7 הראה הבדלים קטנים שאינם עקביים בכיוונם בין הקוהורטות וללא קשר מאוחד מובהק (log₂FC = 0.036, 95% CI −0.073 to 0.146; BH-FDR = 0.291; I2 = 0%). לפיכך, מבין ארבעת הגנים ששוחזרו באמצעות MR, MAP1LC3A הראה את העדות החזקה והעקבית ביותר לביטוי דיפרנציאלי הקשור לגידול.
ביטול גנים וירטואלי ברמה של תא בודד חושף הפרעות שעתוק ספציפיות למטרה הניתנות לשחזור
ארבעת הגנים שעברו רפליקציה ב-MR הוערכו ב-4,916 תאים ממאירים זכאים מ-20 גידולי GBM בבוגרים מסוג IDH-wild-type ב-GSE131928. ATG7, RPTOR, MAP1LC3A ו-CHMP6 זוהו ב-42.78%, 45.89%, 46.89% ו-31.90% מהתאים הממאירים הזכאים, בהתאמה, דבר התומך בהכללתם בניתוח ה-virtual knockout (Supplementary Figure 4; Supplementary File 1). כדי לצמצם את חוסר האיזון בייצוג המטופלים, נדגמו באופן אקראי 120 תאים מכל גידול, מה שהניב מערך נתונים מאוזן של 2,40 תאים ממאירים. כל גן מטרה הוערך לאורך חמש הרצות עם seed עצמאי, מה שהוביל ל-20 ניתוחי virtual knockout.
תוך שימוש בקריטריון שנקבע מראש של BH-FDR < 0.05 בלפחות שלושה מחמשה הרצות, זיהתה נוק-אאוט וירטואלית שלושה גנים רבוליים במורד הזרם עבור ATG7, 15 עבור RPTOR, ארבעה עבור MAP1LC3A, ושבעה עבור CHMP6 (איור 4A; איור משלים 5). קבוצת הקונסנזוס של RPTOR כללה את RND3, NKAIN4, CHI3L1, CDKN1A, BCAN, PDGFRA, OLIG1, LHFPL3, ENO2, HILPDA, LGALS3, ANXA1, CNTN1, NAMPT, ו-SCRG1. קבוצת הקונסנזוס של MAP1LC3A כללה את RND3, CD24, BCAN, ו-S10B, בעוד שקבוצות הקונסנזוס של ATG7 ו-CHMP6 הכילו שלושה ושבעה גנים, בהתאמה. יישום קריטריון מובהקות מחמיר יותר בלפחות ארבעה מחמשה הרצות צמצם את קבוצות הקונסנזוס לשני גנים הקשורים ל-ATG7, תשעה גנים הקשורים ל-RPTOR, גן אחד הקשור ל-MAP1LC3A, וארבעה גנים הקשורים ל-CHMP6. יחד, ניתוחים אלו זיהו שיבושים שעתוקיים הניתנים לשחזור וספציפיים למטרה בתוך הרשת הרגולטורית של התאים הממאירים שהושכת.
ניתוחי העשרה פונקציונלית ורשתות משותפות מזהים תגובות קונברגנטיות הקשורות להיצמדות
ארבעת סטים של רצפי קונסנזוס הספציפיים למטרה כללו 17 גנים ייחודיים במורד המסלול. ניתוח רשת זיהה את RND3 כגן היחיד המשותף לכל ארבעת ה-virtual knockouts, בעוד ש-BCAN, CD24 ו-NKAIN4 היו משותפים לשלושה מתוך ארבעת ה-virtual knockouts. CHI3L1, LHFPL3 ו-PDGFRA היו משותפים לשתי מטרות, בעוד ששאר עשרת הגנים היו ספציפיים למטרה (איור 4B,C). החפיפה הזוגית המוחלטת הגדולה ביותר התרחשה בין RPTOR ל-CHMP6, שחלקו שישה גנים במורד המסלול. בהתבסס על מדד הדמיון של Jaccard, החפיפה הפרופורציונלית הגדולה ביותר נצפתה בין ATG7 ל-CHMP6 (מדד Jaccard = 0.429), ואחריהם RPTOR–CHMP6 ו-MAP1LC3A–CHMP6 (שניהם 0.375).
ניתוח Gene Ontology של קבוצת הקונצנזוס המאוחדת של 17 הגנים זיהה עשרה מונחים המועשרים באופן מובהק לאחר תיקון Benjamini–Hochberg (איור 4D; איור משלים 6). מונחי תהליכים ביולוגיים מועשרים כללו cell adhesion (BH-FDR = 0.0028), positive regulation of cell population proliferation (BH-FDR = 0.0028), inflammatory response (BH-FDR = 0.0139), positive regulation of the ERK1/ERK2 cascade (BH-FDR = 0.0165), ו-cell–cell adhesion (BH-FDR = 0.0196). מונחי רכיבים תאיים מובהקים כללו cell surface, extracellular region, plasma membrane, ו-extracellular matrix, בעוד ש-carbohydrate binding היה המונח היחיד המועשר באופן מובהק בתחום התפקוד המולקולרי. Cell adhesion נותר מועשר באופן מובהק כאשר הניתוח הוגבל לגנים המשותפים לפחות לשני יעדים וכאשר הוחל קריטריון קונצנזוס מחמיר יותר של ארבעה מתוך חמישה ריצות. אף נתיב ב-KEGG או ב-Reactome לא נותר מובהק לאחר תיקון BH.
העשרה הספציפית למטרה הייתה נרחבת ביותר עבור RPTOR, שקבוצת הקונסנזוס של 15 הגנים שלו הייתה מועשרת בארבעה מונחים של תהליכים ביולוגיים ובארבעה מונחים של רכיבים תאיים (איור משלים 7). קבוצת הקונסנזוס של MAP1LC3A הייתה מועשרת עבור היצמדות תאים (BH-FDR = 8.74 × 10⁻4) ופיתוח מערכת העצבים המרכזית (BH-FDR = 0.0364), בעוד שסט הקונסנזוס של CHMP6 היה מועשר בתהליכי היצמדות תאים (BH-FDR = 0.075). אף מונח ב-Gene Ontology לא הגיע לרמת BH-FDR < 0.05 עבור סט הקונסנזוס של שלושת הגנים ATG7.
זמינות נתונים:
מאגרי נתונים טרנסקריפטומיים ציבוריים זמינים ב-GEO תחת מספרי גישה GSE19653, GSE4290, GSE116520, ו-GSE131928. הסטטיסטיקות המסכמות של תוצאות ה-GBM הופקדו תחת גישה מבוקרת בארכיון הגנום-פנום האירופי (EGA), מאגר נתונים EGAD01001657 (https://ega-archive.org/datasets/EGAD0101657). הגישה מנוהלת על ידי ועדת הגישה לנתונים האחראית ודורשת בקשה מאושרת והסכם גישה לנתונים. תחת ההסכם הרלוונטי, המחברים אינם מורשים להפיץ מחדש את הקבצים או להפקידם במאגר ציבורי. נתוני סיכום של eQTL זמינים מקונסורציום eQTLGen ומ-GTEx בהתאם לתנאי הגישה והשימוש שלהם. סקריפטים של ניתוח התומכים במחקר זה מסופקים כ-Supplementary Coding File 1 וכ-Supplementary Coding File 2.
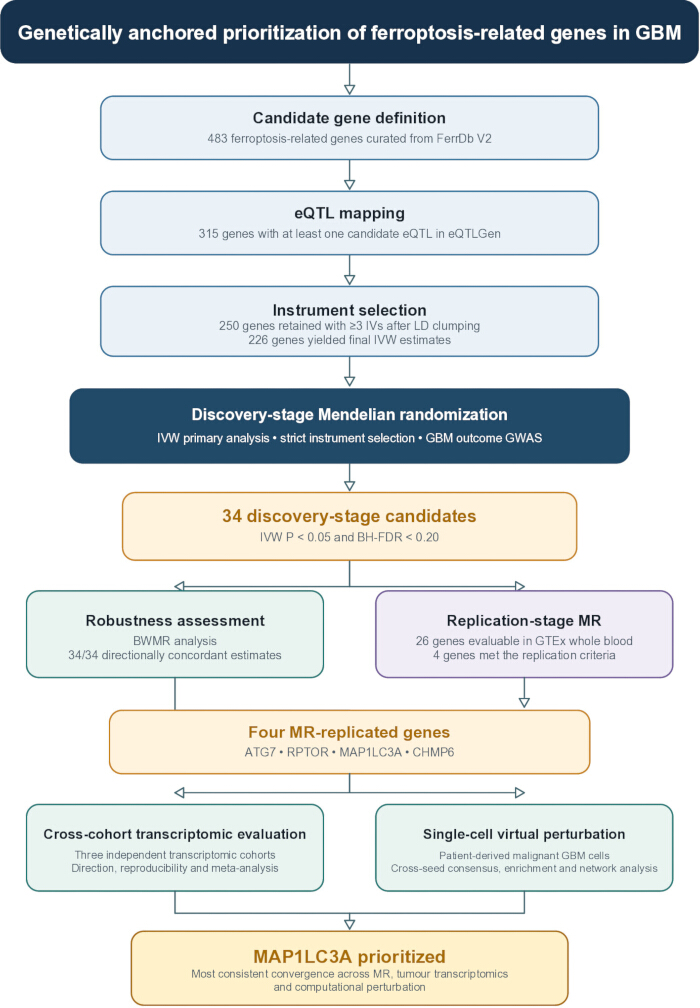
איור 1: מערך מחקר ומסגרת לשילוב ראיות לצורך תיעדוף מבוס-גנטיקה של גנים הקשורים לפרופטוזיס בגלובסטומה. גנים הקשורים לפרופטוזיס (Ferroptosis) אשר נאספו מ-FerrDb V2 מופו ל-eQTLGen, נסרקו לאיתור כלי cis-expression quantitative trait locus (cis-eQTL) עצמאיים, והוערכו באמצעות רנדומיזציה מנדלית (MR) בשלב הגילוי. מתוך 483 הגנים שנאספו, ל-315 היה לפחות cis-eQTL מועמד אחד, 250 שמרו על לפחות שלושה כלים עצמאיים לאחר קיבץ של שיווי חסר קישור (LD clumping), ו-26 הניבו הערכות inverse-variance weighted (IVW) תקפות לאחר בדיקה של ווריאנט-תוצאה והרמוניזציה של אללים. שלושים וארבעה גנים עמדו בקריטריונים שלב הגילוי, ולאחר מכן נעשה שימוש ברנדומיזציה מנדלית משוקללת בייסיאנית (BWMR) כדי להעריך את החוסן. עשרים ושישה גנים היו ניתנים להערכה לאחר מכן ב-MR שלב השחזור באמצעות cis-eQTLs של דם מלא מ-GTEx V10. ארבעה גנים (ATG7, RPTOR, MAP1LC3A, ו-CHMP6) עמדו בקריטריוני השחזור והוערכו בהמשך בשלוש קהלות טרנסקריפטומיות עצמאיות ובאמצעות הפרעה וירטואלית בתאים ממאירים שהופקו מחולה. אינטגרציה של ניתוחים משלימים אלו תיעדו את MAP1LC3A כבעל עדיפות לחקירה נוספת.
BWMR = רנדומיזציה מנדלית משוקללת בייסיאנית; eQTL = locus תכונה כמותית של ביטוי; IVW = משוקל לפי שונות הפוכה; LD = שיווי חסר קישור; MR = רנדומיזציה מנדלית. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של דמות זו.
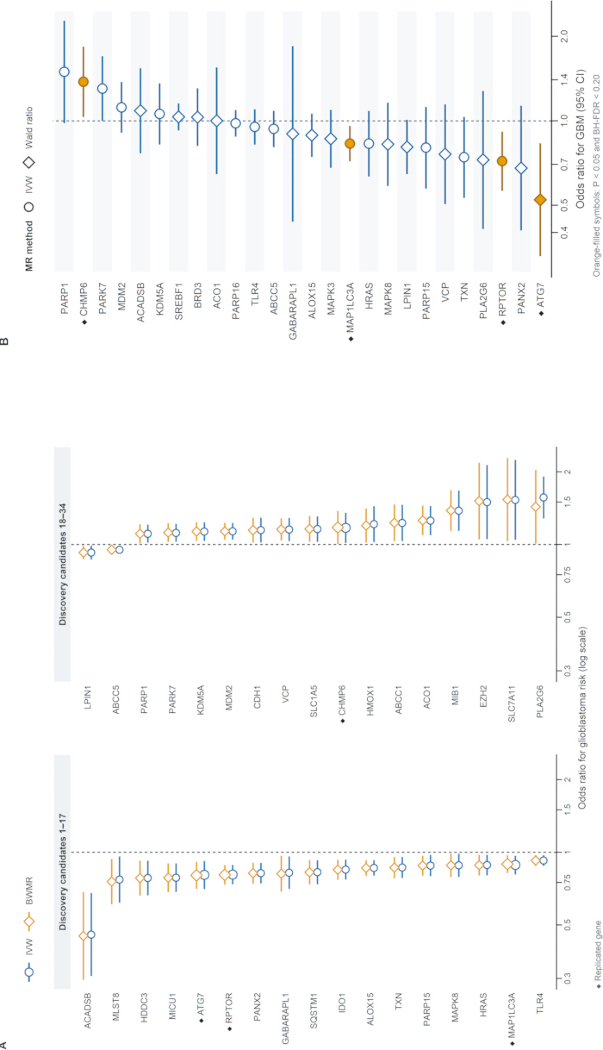
איור 2: חוסן בשלב הגילוי ושחזור עצמאי של השפעות גנים הקשורות לפרופטוזיס שנחזו גנטית על הסיכון לגליובלסטומה. (A) תרשימי יער (forest plots) זוגיים המשווים בין הערכות של רנדומיזציה מנדלית משוקללת לפי שונות הפוכה (IVW) לבין רנדומיזציה מנדלית משוקללת בייסיאנית (BWMR) עבור 34 הגנים שעמדו בקריטריונים שלב הגילוי ב-IVW P < 0.05 ושיעור התגליות השגויות של Benjamini–Hochberg (BH-FDR) < 0.20. ריבועים לפני שמות גנים מציינים גנים שנתמכו לאחר מכן בניתוח השחזור העצמאי. המשולש מסמן את LPIN1, שעבורו הערכות ה-IVW וה-BWMR הראו כיווני השפעה סותרים. (B( תרשים יער (Forest plot) של 26 הגנים שנבחנו במערך הנתונים שלב השחזור. מוצגות הערכות IVW עבור גנים עם לפחות שני כלים (instruments), בעוד שעבור גנים עם כלי בודד מוצגות הערכות Wald-ratio. סמלים ממולאים בכתום מסמנים את ATG7, RPTOR, MAP1LC3A ו-CHMP6, אשר עמדו בקריטריוני השחזור (P < 0.05 ו-BH-FDR < 0.20). נקודות וקוים אופקיים מייצגים יחסי סיכויים (ORs) ומרווחי סמך (CIs) של 95%, בהתאמה; הקו המקווקו האנכי מציין OR = 1. יחסי הסיכויים מוצגים בסולם לוגריתמי. GBM = גליובלסטומה. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
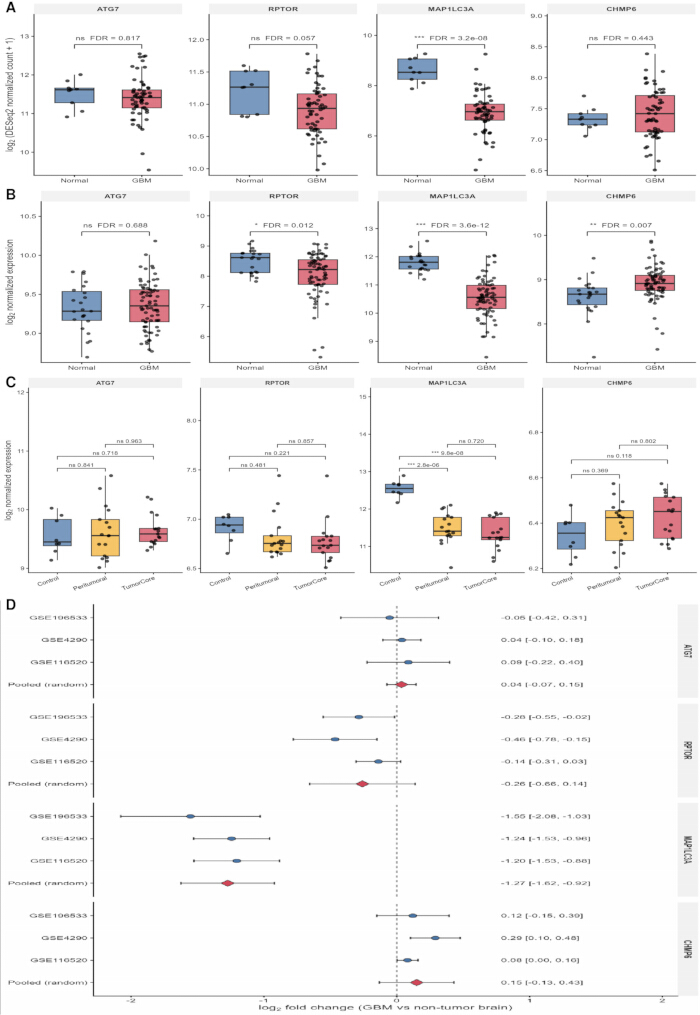
איור 3הערכה טרנסקריפטומית רב-קוהורט של ארבעת הגנים ששוכפלו באמצעות MR. ביטוי של ATG7, RPTOR, MAP1LC3A ו-CHMP6 ב-GSE196533 (61 דגימות של גליומה בדרגה 4 שהוגדרו כ-GBM במטא-נתונים שהופקדו ותשע דגימות ממוח שאינן נאופלסטיות); (A(GSE4290 (7 דגימות GBM ו-23 דגימות מוח שאינן גידולים); (B) ו-GSE16520 (17 דגימות מליבת הגידול, 17 דגימות פרי-טומורליות תואמות למטופלים ושמונה דגימות ביקורת לא-נאופלסטיות); (Cהתיבות מציינות את החציון ואת הטווח הבינ-רבעוני (IQR), השפם נמתח עד ל-1.5 × IQR, והנקודות מייצגות דגימות בודדות.ד'() שינויי קיפול (fold changes) של log₂ ספציפיים למחקר ומטא-אנליזה של אפקטים אקראיים המשווים רקמת גידול או רקמת ליבת-גידול לרקמת מוח שאינה נאופלסטית. נקודות וקווים אופקיים מציינים אומדנים ספציפיים למחקר ורווחי סמך של 95%, בעוד שמעוינים מייצגים אומדנים מאוחדים של נראות מקסימלית מוגבלת (restricted maximum-likelihood) עם הסקת מסקנות לפי Hartung–Knapp. ערכים חיוביים מצביעים על ביטוי גבוה יותר ברקמת הגידול. FDR = שיעור תגליות שגויות; GBM = גליובלסטומה; MR = רנדומיזציה מנדלית. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
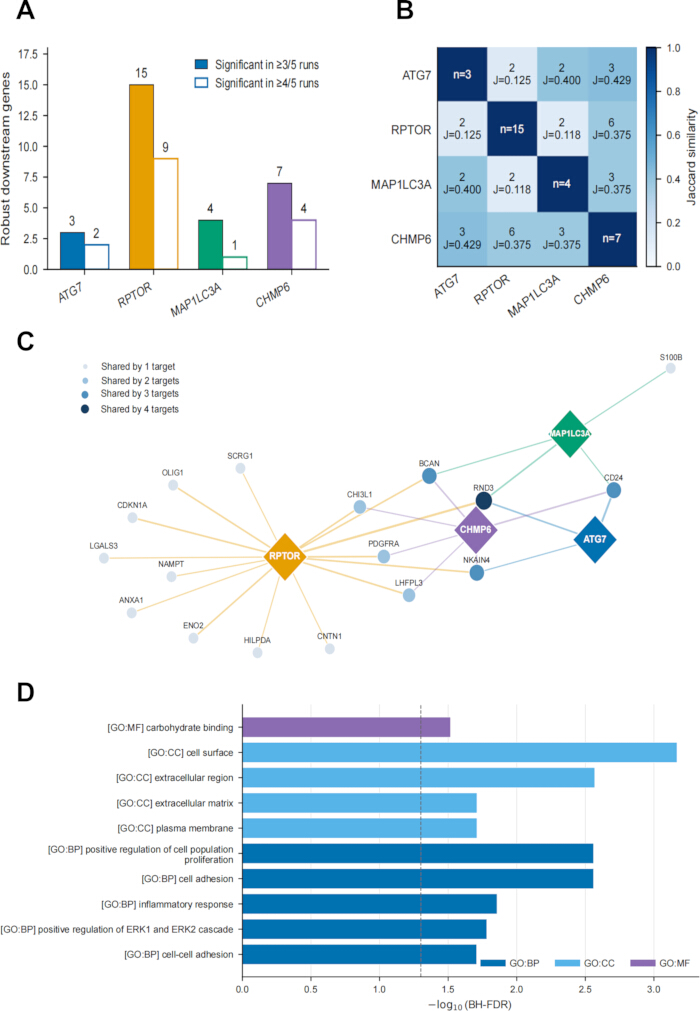
איור 4הסכמה של זריעת-סבב (Cross-seed) והתכנסות תפקודית של נוק-אאוטים וירטואליים ברמה של תא בודד בתאי גליובלסטומה ממאירים. (A( מספר הגנים במורד הזרם (downstream genes) שנמצאו כעמידים עבור כל מטרה, בהתבס על הקריטריון שהוגדר מראש של מובהקות בלפחות שלוש מחמש הרצות, ועל קריטריון הרגישות המחמיר יותר של ארבע מחמש הרצות. (B) חפיפה זוגית של גנים תחת-זרמיים (downstream) חסונים; התאים מדווחים על ספירות חפיפה ומקדמי דמיון ז'קאר (Jaccard). (C( רשת דו-צדדית המקשרת בין ארבעת יעדי ה-virtual-knockout (מעוינים) לבין גנים תחתונים חסונים (עיגולים). צבעי הקשתים מציינים את היעד שהופר, בעוד שגודל העיגול ועוצמת הצבע מעידים על מספר היעדים החולקים כל תגובה תחתית. הקשתים מייצגים קשרים בין הפרעות חישוביות הניתנות לשחזור ולא אינטראקציות מולקולריות ישירות. (ד׳) העשרה משמעותית של Gene Ontology עבור סט קונצנזוס מאוחד של 17 גנים. אורך העמודה מייצג −log10(BH-FDR), הקו המקווק מציין את סף המובהקות (BH-FDR = 0.05), והצבעים מייצגים תהליך ביולוגי (BP), רכיב תאי (CC) ותפקוד מולקולרי (MF). ניתוח העשרה תפקודי השתמש ברקע של רשת בקרה מאוזנת-מטופלים הכוללת 1,04 גנים. אף נתיב ב-KEGG או ב-Reactome לא נותר מובהק לאחר תיקון Benjamini–Hochberg. קיצורים: BH-FDR = שיעור התגליות השגויות של Benjamini–Hochberg; BP = תהליך ביולוגי; CC = רכיב תאי; GO = אונטולוגיית גנים (Gene Ontology); KEGG = אנציקלופדיית הגנים והגנומים של קיוטו (Kyoto Encyclopedia of Genes and Genomes); MF = תפקוד מולקולרי. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
טבלה 1: סקירה כללית של מקורות הנתונים ותפקידיהם האנליטיים במחקר. ספירת הדגימות מייצגת את התצפיות שנכללו באנליזות הנוכחיות. BH-FDR = Benjamini–Hochberg false discovery rate; cis-eQTL = cis-expression quantitative trait locus; EGA = European Genome-phenome Archive; GBM = glioblastoma; GTEx = Genotype-Tissue Expression; GWAS = genome-wide association study; IV = instrumental variable; MR = Mendelian randomization; RNA-seq = RNA sequencing. אנא לחצו כאן להורדת טבלה זו.
טבלה 2: ראיות טרנסקריפטומיות חוצות-קוהורט לארבעת הגנים ששוכפלו ב-MR. הערכים מייצגים שינויים במקדם log₂ (log₂ fold changes) עבור GBM או רקמת ליבת גידול ביחס לרקמת מוח שאינה נאופלסטית. אומדנים מאוחדים התקבלו באמצעות מודלים של אפקטים אקראיים של סבירות מקסימלית מוגבלת (restricted maximum-likelihood) עם הסקת Hartung–Knapp. CI = רווח בר סמך; FDR = שיעור תגליות שגויות. אנא לחצו כאן להורדת טבלה זו.
איור משלים 1: ניתוחי רגישות של רנדומיזציה מנדלית בשלב הגילוי עבור ארבעת הגנים שחזרו. MAP1LC3A, ATG7, RPTOR ו-CHMP6 מוצגים כל אחד באופן הבא: (A) ניתוח השמטה של משתנה אחד (leave-one-out); (B) תרשים פיזור להשוואת שיטות; ו-(C) תרשים משפך (funnel plot).אנא לחצו כאן להורדת הקובץ.
איור משלים 2: תרשימי אבחון של רנדומיזציה מנדלית בשלב השחזור עבור שלושת הגנים ששוחזרו עם מספר מכשירים. עבור MAP1LC3A, RPTOR ו-CHMP6 מוצגים הפרטים הבאים: (A) תרשים פיזור להשוואת שיטות; ו-(B) תרשים משפך. ATG7 נאמד באמצעות יחס וולד (Wald ratio) של מכשיר בודד, ולכן לא היה כשיר להצגה בתרשימי אבחון של מספר מכשירים.אנא לחץ כאן להורדת קובץ זה.
איור משלים 3: ניתוח רכיבים ראשיים של שלוש קוהורטות טרנסקריפטומיות בלתי תלויות. (A) קוהורטת ריצוף RNA של GSE19653. (B) קוהורטת Affymetrix GPL570 של GSE4290. (C) קוהורטת Illumina GPL1058 של GSE16520. ניתוח רכיבים ראשיים בוצע באמצעות 50 הגנים או הגששים בעלי השונות הגבוהה ביותר בתוך הקוהורטה. כל נקודה מייצגת דגימה ביולוגית; הצבעים מציינים קבוצות רקמה; ותוויות הצירים מדווחות על השונות המוסברת על ידי כל רכיב ראשי.אנא לחץ כאן להורדת קובץ זה.
איור משלים 4: יכולת זיהוי של ארבעת הגנים ששוחזרו ב-MR בתאי GBM ממאירים של מבוגרים. (A) שיעורי זיהוי כוללים של ATG7, RPTOR, MAP1LC3A, ו-CHMP6 בקרב 4,916 תאים ממאירים מ-20 גידולי GBM מסוג IDH-wild-type של מבוגרים ב-GSE131928/SCP393. (B) שיעורי זיהוי ברמת המטופל עבור אותם גנים. הצבע מציין את אחוז התאים הממאירים עם TPM > 0.אנא לחצו כאן להורדת קובץ זה.
איור משלים 5: שחזור חוצה-זרעים של אותות מורד ב-virtual-knockout. (A) מספר הגנים במורד שהוגדרו כבעלי מובהקות BH-FDR בחמישה הרצות עצמאיות עבור כל מטרה. הנקודות מייצגות זרעים אקראיים, והפסים האופקיים מציינים את החציונים. (B) גנים במורד בעלי מובהקות בלפחות שלוש מתוך חמש ההרצות. ציר ה-x מראה את מספר ההרצות המובהקות, הצבעים מזהים את המטרה שהופרעה, וגודל הנקודה מייצג את סטטיסטיקת ה- Z החציונית של scTenifoldKnk. הגן המטרה עצמו הוצא מהניתוח.אנא לחץ כאן להורדת קובץ זה.
איור משלים 6: ניתוחי רגישות להעשרה בגישת איחוד, שיתוף וסף מחמיר. העשרה תפקודית של (A) קונסנזוס מאוחד שהוגדר כבעל מובהקות בלפחות שלוש מתוך חמש הרצות; (B) גנים המשותפים ללפחות שתי מטרות תחת קריטריון שלוש-מתוך-חמש; (C) קונסנזוס מחמיר מאוחד שהוגדר כבעל מובהקות בלפחות ארבע מתוך חמש הרצות; ו-(D) גנים המשותפים ללפחות שתי מטרות תחת קריטריון של ארבע-מתוך-חמש. ציר ה-x מציג −log₁₀(nominal P), גודל הנקודה משקף את מספר החפיפה, והצבעים מציינים את מאגר נתוני האנוטציה. נקודות מלאות הגיעו ל-BH-FDR < 0.05, בעוד שנקודות פתוחות מציינות מונחים גששיים עם nominal P < 0.05. רקע של רשת רגולטורית הכוללת 1,04 גנים שימש לאורך כל הניתוח.אנא לחצו כאן להורדת קובץ זה.
איור משלים 7: העשרה פונקציונלית ספציפית למטרה של תגובות knockout וירטואליות חסונות. העשרה של גנים במורד השב בעקבות knockout וירטואלי של (A) ATG7; (B) RPTOR; (C) MAP1LC3A; ו-(D) CHMP6. ציר ה-x מציג −log₁₀(nominal P), גודל הנקודה משקף את מספר החפיפה, והצבעים מציינים GO: BP, GO: CC, GO: MF, KEGG, או Reactome. נקודות מלאות הגיעו ל-BH-FDR < 0.05, בעוד שנקודות פתוחות מציינות מונחים גששיים עם nominal P < 0.05. 1,04 הגנים המרכיבים את הרשת הרגולטורית המאוזנת למטופלים שימשו כרקע להעשרה.אנא לחץ כאן כדי להוריד קובץ זה.
קובץ משלים 1: טבלאות משלימות התומכות בתעדוף רב-שלבי של גנים הקשורים לפרופטוזיס (ferroptosis) המקושרים לרגישות לגליובלסטומה. קובץ משלים זה מכיל את כל הטבלאות המשלימות התומכות בניתוחים הגנטיים, התסריפטומיים ובניתוחי תא בודד. הוא כולל את הסריקה והבחירה של גנים וכלי גנטיים הקשורים לפרופטוזיס; תוצאות מלאות של רנדומיזציה מנדלית בשלבי הגילוי והשחזור יחד עם ניתוחי רגישות, כולל הערכות של הטרוגניות, פלייוטרופיה אופקית ו-MR-PRESSO; מאפייני קוהורט, ניתוחי ביטוי דיפרנציאלי ומטא-אנליזה בין-קוהורט של גנים שתועדפו גנטית; וכן את ניתוחי ה-virtual knockout של תא בודד, הערכות הדירות, ניתוחי העשרה תפקודית ותוצאות של רשתות משותפות.אנא לחצו כאן כדי להוריד קובץ זה.
קובץ קוד נלווה 1: סקריפטים ב-R וב-Python ששימשו עבור הרנדומיזציה המנדלית, ניתוחים טרנסקריפטומיים, נוק-אאוט וירטואלי של תא בודד, העשרה פונקציונלית וניתוחי רשת המתוארים במחקר זה.אנא לחצו כאן להורדת קובץ זה.
קובץ קידוד נלווה 2: סקריפטים של ניתוח תומך, שגרות שרטוט וכלי עזר לזרימת עבודה ששימשו ליצירת תוצאות המחקר, האיורים והפלט הנלווה.אנא לחצו כאן כדי להוריד קובץ זה.
דיון
מחקר זה שילב אסוציאציה גנטית, רנדומיזציה מנדלית (MR) בשלב השחזור, טרנסקריפטומיקה של גידולים ומודלים של תאים בודדים המופקים מחולים, במטרה לתעדף גנים הקשורים לפרופטוזיס (ferroptosis) המקושרים לרגישות לגליובלסטומה (GBM). סריקה של 483 גנים נבחרים מול מחקר אסוציאציה גנומי רחב (GWAS) של GBM, שכלל 6,183 מקרי חולי ו-18,169 ביקורות, זיהתה 34 מועמדים בשלב הגילוי, שארבעה מהם — ATG7, RPTOR, MAP1LC3A ו-CHMP6 — נתמכו בניתוח השחזור באמצעות משאב עצמאי של לוקוסים כמותיים של ביטוי (eQTL). הראיות הפכו לסלקטיביות יותר ככל שהניתוחים התקדמו מעבר לאנליזות הגנטיות. ביטוי MAP1LC3A נמצא מופחת (downregulated) באופן עקבי בשלוש קהלות גידולים עצמאיות, ונשאר מובהק במטא-אנליזה חוצת-קהלות. דפוס ביטוי זה בגידול השלים את האסוציאציה המגנה שנצפתה בניתוחי ה-MR, למרות ששתי הגישות בוחנות היבטים שונים של הביולוגיה של המחלה. RPTOR ו-CHMP6 הראו ראיות טרנסקריפטומיות עקביות מבחינת הכיוון אך פחות מכריעות, בעוד ש-ATG7 היה חסר תמיכה ניתנת לשחזור ברמת הרקמה. נטרון וירטואלי (Virtual knockout) חשף עוד תגובות שעתוק ספציפיות למטרה, אך חופפות חלקית, בתאים ממאירים. יחד, שכבות ניתוח רצפיות אלו זיקקו את ממצאי ה-MR הראשוניים על ידי הבחנה בין מועמדים עם דרגות שונות של תמיכה הרלוונטית למחלה, כאשר MAP1LC3A עלה כמועמד החזק ביותר באופן כולל.
חלק ניכר מהראיות הקיימות בבני אדם הקושרות פֵרוֹפְּטוֹזיס (ferroptosis) לגליומה הופקו ממחקרי ביטוי גידולים. ניתוחים של TCGA, CGGA ומסדי נתונים ציבוריים אחרים זיהו שוב ושוב חתימות הקשורות לפֵרוֹפְּטוֹזיס המקושרות להישרדות, לדרגת הגידול, למאפיינים מולקולריים ולמאפיינים חיסוניים9,27. למרות שמחקרים אלו ביססו את הרלוונטיות הקלינית של תוכניות שעתוק הקשורות לפֵרוֹפְּטוֹזיס, פרופילי ביטוי שהתקבלו מגידולים מבוססים אינם יכולים להבחין בין גנים הקשורים לרגישות לבין שינויים בשעתוק הנובעים מהתקדמות הגידול או משקפים הבדלים בהרכב התאי. ניתוחים גנטיים מספקים פרספקטיבה משלימה. רובינסון ועמיתיו שילבו נתוני GWAS של גליומה עם מאגרי נתוני eQTL של המוח ושל דם מלא באמצעות MR וקולוקליזציה (colocalization), תוך תיעדוף גנים פוטנציאליים לרגישות עם השפעות תלויות-רקמה, והדגימו התאמה מוגבלת בין הערכות הנגזרות מהדם ומן המוח11. לאחרונה, מחקר MR אינטגרטיבי המבוסס על eQTL ו-pQTL שילב ראיות גנטיות עם ניתוחי ביטוי דיפרנציאלי וקולוקליזציה כדי לתעדף את GPX7 ו-CXCL10 להערכה נוספת ב-GBM12. בניגוד לכך, המחקר הנוכחי החל עם סט גנים מוגדר מראש הקשור לפֵרוֹפְּטוֹזיס והעריך מועמדים שתועדפו גנטית באמצעות MR בשלב השחזור, טרנסקריפטומיקה של גידולים והפרעה חישובית ברזולוציית תא. הזיכוק ההדרגתי מ-34 קשרים בשלב הגילוי לארבעה גנים ששוחזרו, ובסופו של דבר ל-MAP1LC3A כגנו היחיד שהראה ביטוי דיפרנציאלי בעל מובהקות סטטיסטית בין מספר קהלות, ממחיש את הערך המבחין של שילוב מספר גישות אנליטיות משלימות. באופן חשוב, הניתוחים הטרנסקריפטומיים לא נועדו לתקף את הכלים הגנטיים הנגזרים מהדם, אלא לקבוע האם גנים שתועדפו גנטית הראו גם דפוסי ביטוי הניתנים לשחזור ורלוונטיים למחלה.
MAP1LC3A מעורר עניין מיוחד מכיוון שהממצאים הנוכחיים מרחיבים את האפיון הקודם שלו כסמן פרוגנוסטי וכסמן הקשור לגידולים. מחקר ביו-אינפורמטי מרובה-קוהורטות קודם שילב את MAP1LC3A בחתימת ששה גנים הקשורה להישרדות ולהישנות של GBM, ודיווח גם על מתילציה משובשת של MAP1LC3A, אם כי תרומתו לרגישות למחלה נותרה לא פתורה28. כאן, ביטוי גבוה יותר של MAP1LC3A שנחזה גנטית היה קשור באופן עקבי לרגישות נמוכה יותר ל-GBM בשני שלבי ה-MR. יתרה מכך, נצפתה דה-רגולציה (downregulation) הדירה של MAP1LC3A בשלוש קוהורטות עצמאיות של גידולים למרות הבדלים בפלטפורמות הביטוי, בהרכבי הדגימות ובמתודולוגיות האנליטיות, והערכת המטא-אנליזה המאוחדת לא הראתה הטרוגניות גלויה בין המחקרים. למרות שממצאים אלו אינם קובעים כי ביטוי מופחת של MAP1LC3A הוא זה שמתניע את ה-GBM, הם מספקים ראיות חזקות יותר לקשר בין הגן לרגישות למחלה מאשר ניתוחי ביטוי דיפרנציאלי של גידולים לבדם. MAP1LC3A מקודד לאיזופורמים של LC3A בתוך משפחת חלבוני ATG8 של יונקים. Bai ועמיתיו הדגימו כי וריאנט 1 של LC3A עובר קוניוגציה של פוספטידיל-אתנולמין כדי ליצור LC3A-II ואיתור לאוטופגוזומים במהלך אוטופגיה מושרית29. הוכח גם כי תחלופה אוטופגית של פריטין משפיעה על הרגישות לפרופטוזיס בתאי GBM, כולל תחת מחסור בציסטין ובמודלים תלויים-ALDH1A330,31. עם זאת, מחקרים אלו בחנו בעיקר את סך ה-LC3-II או LC3B ולא את MAP1LC3A באופן ספציפי. בניתוחי התא הבודד הנוכחיים, הפרעה וירטואלית (virtual perturbation) של MAP1LC3A הניבה תגובות במורד המסלול (downstream) הדירות שהיו עשירות בתהליכים הקשורים להיצמדות תאים. יחד, תצפיות אלו מזהות את MAP1LC3A כמועמד ממוקד לחקירת נקודת המפגש בין בקרה הקשורה לאוטופגיה, רגישות לפרופטוזיס והתנהגות של תאים ממאירים ב-GBM.
הגנים ששוחזרו באמצעות MR קיבלו רמות תמיכה משתנות מניתוחים מאוחרים יותר. ביטוי RPTOR גבוה יותר שנחזה גנטית היה קשור לפגיעות נמוכה יותר ל-GBM בשני שלבי ה-MR, וביטויו היה נמוך באופן עקבי בכל שלוש קבוצות הגידולים, אם כי האומדן המאוחד לא הגיע למשמעות סטטיסטית. נוק-אאוט וירטואלי של RPTOR הפיק את קבוצת השינויים התעתקתים (transcriptional) השחזירים הגדולה ביותר במורד המסלול, עם העשרה הכוללת את אותות ERK, תגובות דלקתיות, ת proliferation של תאים והידבקות תאים. למרות שממצאים אלו עולים בקנה אחד עם תפקידו המוכר של RPTOR כפיגום ל-mTORC1, אין לפרש את עוצמת התגובה התעתקתית כראיה להשפעה סיבתית חזקה יותר32. באופן דומה, CHMP6 הפגין קשרי MR תואמים בשני השלבים, כאשר ביטוי גבוה יותר שנחזה גנטית היה קשור לעלייה בפגיעות ל-GBM. למרות שביטוי CHMP6 היה מוגבר באופן עקבי בכל שלוש קבוצות הגידולים, רווח הסמך המאוחד כלל את ערך האפס, וההטרוגניות בין המחקרים הייתה בינונית. ראיות ניסיוניות המראות שתיקון ממברנה תלוי-CHMP6 באמצעות ESCRT-III מדכא מוות תאי פרופטוטי מספקות הקשר מכניסטי סביר, אם כי ממצאים אלו התקבלו מחוץ למודלים של GBM33. לעומת זאת, ATG7 הראה קשר גנטי מגן ששוחזר, אך לא דפוס ביטוי בגידול ששוחזר. נוק-אאוט וירטואלי זיהה רק שלושה גנים חזקים במורד המסלול, ושום קטגוריה פונקציונלית לא נותרה משמעותית לאחר תיקון לבדיקות מרובות. מחקרים ניסיוניים קודמים קשרו את האוטופגיה התלויה ב-ATG7 להסתגלות של GBM ולתגובה לטיפול34,35, אך תצפיות אלו אינן פותרות את התמיכה החלשה יחסית בין הפלטפורמות שנצפתה כאן. בהתאם לכך, RPTOR, CHMP6 ו-ATG7 נותרים מועמדים משניים סבירים, בעוד ש-MAP1LC3A הפגין את ההסכמה החזקה ביותר בין הניתוחים הגנטיים, התעתקתניים וניתוחי ההפרעה החישובים.
ניתוחי ההפרעה הווירטואליים לא זיהו מסלול תחתון (downstream) בודד המשותף לכל ארבעת הגנים שתועדפו. במקום זאת, תגובות שעתוק הניתנות לשחזור הראו חפיפה חלקית בלבד, כאשר RND3 היה הגן התחתון היחיד המשותף לכל ארבע הרשתות הספציפיות למטרה. ההתכנסות התפקודית הברורה ביותר כללה הידבקות תאים ותהליכים חוץ-תאיים או תהליכים על פני שטח התא, וההעשרה להידבקות תאים נותרה מובהקת תחת קריטריון ה-cross-seed המחמיר יותר. אף מסלול ב-KEGG או ב-Reactome לא נותר מובהק לאחר תיקון לבדיקות מרובות. תצפית זו היא בולטת מכיוון שמרבית הגנים המועמדים נלקחו מתוך קבוצה מאושרת (curated) של גנים הקשורים ל-ferroptosis, אך ההשפעות התחתונות החזויות שלהם בתאי GBM ממאירים לא נשלטו על ידי מסלולי ferroptosis קנוניים. במקום זאת, תרומתם לרגישות של GBM עשויה לכלול תהליכים תאיים רחבים יותר שבהם פועל המנגנון הקשור ל-ferroptosis. הניתוחים הנוכחיים אינם מבססים מנגנון מולקולרי משותף ואינם מזהים את RND3 כמתווך סיבתי. תחת זאת, הם מדגישים קבוצה מוגבלת של תוכניות תאים ממאירים, ובמיוחד אלו הקשורות להידבקות תאים, המצדיקות חקירה ניסיונית עתידית.
יש לפרש מחקר זה כמסגרת תעדוף מדורגת ולא כהקצאה חלוטה של גנים סיבתיים. אף שכבה אנליטית בודדת לא נחשבה לקונקלוסיבית; במקום זאת, קשרי שלב הגילוי הוערכו באופן עקבי באמצעות BWMR, משאב eQTL עצמאי, שלוש קוהורטות טרנסקריפטומיות ומודל רגולטורי של תאים ממאירים שמקורם בחולה. יש להכיר במספר מגבלות. ראשית, סף הגילוי של BH-FDR שהיה < 0.20 נועד לסריקת מועמדים ולא להסקה מאששת, ורק 26 מתוך 34 המועמדים בשלב הגילוי היו ניתנים להערכה בשחזור. שנית, מספר גנים יוצגו על ידי מספר קטן יחסית של כלים גנטיים, ולא בוצעו ניתוחי עוצמה פורמליים ברמת הגן; כתוצאה מכך, יש לפרש קשרים חלשים או אפסיים בזהירות. סף הזכאות של שלושה כלים הגדיל את כיסוי הגנים אך הגביל את הטווח והיציבות של ניתוחי רגישות עבור גנים שיוצגו על ידי שלושה או ארבעה וריאנטים בלבד. למרות שכל כלי שלב הגילוי שנשמר חרג מסף ה-F > 10 המקובל ומועמדים הוערכו בהמשך באמצעות BWMR ושחזור עצמאי, אמצעי הגנה אלו אינם מפצים באופן מלא על מחסור בכלים; לכן, הערכות כאלה צריכות להישאר גששיות. שלישית, שני משאבי ה-eQTL נגזרו מדם מלא וייתכן שאינם לוכדים במדויק השפעות רגולטוריות ספציפיות למוח או לגידול. רביעית, הסטטיסטיקות המסכמות של GBM GWAS הזמינות חסרו את המידע הדרוש לבדיקת כיווניות של Steiger ולניתוחי קולוקליזציה פורמליים. כתוצאה מכך, נותר לא ברור האם אותות הקשר של eQTL ו-GBM בכל לוקוס נובעים מאותו וריאנט סיבתי או מווריאנטים נפרדים בשיווי משקל קישור (linkage disequilibrium). למרות ש-BWMR תוכנן להתמודד עם פליוטרופיה אופקית נרחבת וכלים חריגים, התאמה בין IVW ל-BWMR אינה יכולה לשלול פליוטרופיה שיורית או להוות תחליף לניתוחי קולוקליזציה פורמליים. בנוסף, הקוהורטות הטרנסקריפטומיות העריכו גידולים קיימים ולא פגיעות למחלה, ואחת הקוהורטות כללה דגימות של גליומה בדרגה 4 ולא אך ורק IDH-wild-type GBM. לבסוף, ניתוחי התאים הבודדים הוגבלו לתאים ממאירים מסט נתונים בודד ומידלו הפרעה רגולטורית באופן חישובי ולא ניסיוני; הם לא העריכו תאים שאינם ממאירים בתוך הסביבה המיקרוסקופית של הגידול או שחזרו ישירות הפרעה גנית in vitro או in vivo. בהתאם לכך, הווריאנטים הסיבתיים הבסיסיים, המנגנונים הספציפיים לסוג התא וההשלכות הביולוגיות טרם הוכחו.
מבין ארבעת הגנים ששוכפלו, MAP1LC3A הראה את התמיכה העקבית ביותר לאורך הניתוחים הגנטיים, הטרנסקריפטומיים וניתוחי התא הבודד. RPTOR, CHMP6 ו-ATG7 שימרו ראיות מניתוחי ה-MR הדו-שלביים, אך הראו תמיכה פחות עקבית בניתוחי הטרנסקריפטומיקה וההפרעה (perturbation) שבאו בעקבותיהם. בהתאם לכך, יש להתייחס ל-MAP1LC3A כמועמד בעדיפות גבוהה להמשך חקירה, ולא כאל גן סיבתי מבוסס או מטרה טיפולית. מחקרים עתידיים צריכים לקבוע תחילה האם אותות הקישור של ה-eQTL וה-GBM נמצאים במיקום משותף (colocalize), תוך שימוש במערכי נתונים מלאים ברמת הלוקוס יחד עם משאבים רגולטוריים ספציפיים למוח או לגידול. לאחר מכן, מחקרי הפרעה דו-כיווניים במודלים של GBM המופקים מחולים יוכלו לבחון רגישות ל-ferroptosis, פריקסדציה של ליפידים, הישרדות תאים ותוכניות שעתוק הקשורות להיצמדות שזוהו בניתוחים החישוביים. ניסויים כאלה יהיו נחוצים כדי להבדיל בין השפעות על פגיעות תורשתית למחלה לבין השפעות המשפיעות על התנהגותן של תאי גידול קיימים, וכדי לבחון ישירות את הקשרים המתכנסים שזוהו במחקר זה.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים.
תודות
המחברים מודים לצוות הגנומיקה של הסרטן ב-The Institute of Cancer Research על מתן הגישה לנתוני הסיכום של ה-GWAS לגליומה באמצעות ה-European Genome-phenome Archive (סט נתונים EGAD00010001657). הפקת הנתונים המקורית נתמכה על ידי Cancer Research UK, כולל קרן Bobby Moore, ה-Wellcome Trust, ו-DJ Fielding Medical Research Trust (C1298/A8362).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| BWMR | חבילת R | BWMR | רנדומיזציה מנדלית משוקללת בייסיאנית |
| DESeq2 | Bioconductor | גרסה 1.46.0 | ניתוח ביטוי דיפרנציאלי באמצעות רצף RNA (RNA-sequencing) |
| FerrDb V2 | FerrDb | גרסה 2 | מקור של 483 גנים נבחרים הקשורים לפרופטוזיס |
| מערך מיקרו-מערכים של מסה (bulk) של גליובלסטומה | NCBI Gene Expression Omnibus | GSE4290 | קוהורט להערכה טרנסקריפטומית |
| סטטיסטיקות סיכום של GWAS לגליובלסטומה | ארכיון הגנום-פנום האירופי | EGAD00010001657 | נתוני תוצאים בגישה מבוקרת; 6,183 מקרים ו-18,169 ביקורות |
| ריצוף RNA של תא בודד בשיטת Smart-seq2 בגלובלסטומה (Glioblastoma) | מאגר ביטויי הגנים (Gene Expression Omnibus) של NCBI | GSE131928 | ניתוח וירטואלי של נוק-אאוט (Virtual-knockout) של תאים ממאירים |
| ריצוף RNA מסוג bulk של גליומה בדרגה 4 | NCBI Gene Expression Omnibus | GSE196533 | קוהורט להערכה טרנסקריפטומית |
| סטטיסטיקות סיכום של cis-eQTL של דם מלא מ-GTEx | פרויקט Genotype-Tissue Expression | GTEx V10 | נתוני חשיפה בשלב השכפול |
| limma | Bioconductor | גרסה 3.62.2 | ניתוח ביטוי דיפרנציאלי במערך זעיר (Microarray) |
| מטפור (metafor) | חבילת R | גרסה 4.8-0 | מטא-אנליזה עם אפקטים אקראיים |
| R | R Foundation for Statistical Computing | גרסה 4.4.2 | סביבת מחשוב סטטיסטי |
| scTenifoldKnk | חבילת R | גרסה 1.0.3 | ניתוח Knockout וירטואלי ברמת התא הבודד |
| מערך מיקרו-מערכים (microarray) של גושי רקמה מליבת הגידול ומסביב לגידול | NCBI Gene Expression Omnibus | GSE116520 | קוהורט להערכה טרנסקריפטומית |
| TwoSampleMR | חבילת R | גרסה 0.6.29 | רנדומיזציה מנדלית לשני מדגמים |
| סטטיסטיקות סיכום של cis-eQTL בדם מלא | קונסורציום eQTLGen | eQTLGen | נתוני חשיפה משלב הגילוי |
מקורות
- Weller M, et al. EANO guidelines on the diagnosis and treatment of diffuse gliomas of adulthood. Nat Rev Clin Oncol. 2021;18:170-186.
- Stupp R, et al. Radiotherapy plus concomitant and adjuvant temozolomide for glioblastoma. N Engl J Med. 2005;352:987-996.
- McBain C, et al. Treatment options for progression or recurrence of glioblastoma: a network meta-analysis. Cochrane Database Syst Rev. 2021;5:CD013579.
- Dixon SJ, et al. Ferroptosis: an iron-dependent form of nonapoptotic cell death. Cell. 2012;149:1060-1072.
- Stockwell BR, et al. Ferroptosis: A regulated cell death nexus linking metabolism, redox biology, and disease. Cell. 2017;171:273-285.
- Minami JK, et al. CDKN2A deletion remodels lipid metabolism, priming glioblastoma for ferroptosis. Cancer Cell. 2023;41:1048-1060.e1049.
- Kram H, et al. Glioblastoma relapses show increased markers of vulnerability to ferroptosis. Front Oncol. 2022;12:841418.
- Miao Z, et al. A targetable PRR11-DHODH axis drives ferroptosis- and temozolomide-resistance in glioblastoma. Redox Biol. 2024;73:103220.
- Liu HJ, et al. Ferroptosis-related gene signature predicts glioma cell death and glioma patient progression. Front Cell Dev Biol. 2020;8:538.
- Dong J, et al. Ferroptosis-related gene contributes to immunity, stemness, and predicts prognosis in glioblastoma multiforme. Front Neurol. 2022;13:829926.
- Robinson JW, et al. Transcriptome-wide Mendelian randomization study prioritizing novel tissue-dependent genes for glioma susceptibility. Sci Rep. 2021;11:2329.
- Zhang H, Wang Z, Qiao X, Wu J, Cheng C. Investigating potential drug targets for the treatment of glioblastoma: a Mendelian randomization study. BMC Cancer. 2025;25:654.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369:1318-1330.
- Zhou N, et al. FerrDb V2: update of the manually curated database of ferroptosis regulators and ferroptosis-disease associations. Nucleic Acids Res. 2023;51:D571-D582.
- Võsa U, et al. Large-scale cis- and trans-eQTL analyses identify thousands of genetic loci and polygenic scores that regulate blood gene expression. Nat Genet. 2021;53:1300-1310.
- Melin BS, et al. Genome-wide association study of glioma subtypes identifies specific differences in genetic susceptibility to glioblastoma and non-glioblastoma tumors. Nat Genet. 2017;49:789-794.
- Zeng C, et al. Dissection of transcriptomic and epigenetic heterogeneity of grade 4 gliomas: implications for prognosis. Acta Neuropathol Commun. 2023;11:133.
- Sun L, et al. Neuronal and glioma-derived stem cell factor induces angiogenesis within the brain. Cancer Cell. 2006;9:287-300.
- Kruthika BS, et al. Transcriptome profiling reveals PDZ binding kinase as a novel biomarker in peritumoral brain zone of glioblastoma. J Neurooncol. 2019;141:315-325.
- Neftel C, et al. An integrative model of cellular states, plasticity, and genetics for glioblastoma. Cell. 2019;178:835-849.e821.
- Burgess S, Thompson SG. Avoiding bias from weak instruments in Mendelian randomization studies. Int J Epidemiol. 2011;40:755-764.
- Papadimitriou N, et al. Physical activity and risks of breast and colorectal cancer: a Mendelian randomisation analysis. Nat Commun. 2020;11:597.
- Song W, et al. Causal relationship between gut microbiota and lung squamous cell carcinoma: a bidirectional two-sample Mendelian randomization study. Postgrad Med J. 2025;101:526-534.
- Zhao J, et al. Bayesian weighted Mendelian randomization for causal inference based on summary statistics. Bioinformatics. 2020;36:1501-1508.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43:e47.
- Yun D, et al. A novel prognostic signature based on glioma essential ferroptosis-related genes predicts clinical outcomes and indicates treatment in glioma. Front Oncol. 2022;12:897702.
- Li R, et al. Identification of candidate genes associated with prognosis in glioblastoma. Front Mol Neurosci. 2022;15:913328.
- Bai H, Inoue J, Kawano T, Inazawa J. A transcriptional variant of the LC3A gene is involved in autophagy and frequently inactivated in human cancers. Oncogene. 2012;31:4397-4408.
- Hayashima K, Kimura I, Katoh H. Role of ferritinophagy in cystine deprivation-induced cell death in glioblastoma cells. Biochem Biophys Res Commun. 2021;539:56-63.
- Wu Y, et al. ALDH1-mediated autophagy sensitizes glioblastoma cells to ferroptosis. Cells. 2022;11:4015.
- Carriere A, et al. ERK1/2 phosphorylate Raptor to promote Ras-dependent activation of mTOR complex 1 (mTORC1). J Biol Chem. 2011;286:567-577.
- Dai E, Meng L, Kang R, Wang X, Tang D. ESCRT-III-dependent membrane repair blocks ferroptosis. Biochem Biophys Res Commun. 2020;522:415-421.
- Comincini S, et al. microRNA-17 regulates the expression of ATG7 and modulates the autophagy process, improving the sensitivity to temozolomide and low-dose ionizing radiation treatments in human glioblastoma cells. Cancer Biol Ther. 2013;14:574-586.
- Wang L, et al. Autophagy mediates glucose starvation-induced glioblastoma cell quiescence and chemoresistance through coordinating cell metabolism, cell cycle, and survival. Cell Death Dis. 2018;9:213.