באמצעות מודל ex vivo ex vivo ex plant, חתיכות קטנות מהחלק הרוסטרלי של רקמת השומן הלבנה הוויסרלית מעכברים רזים מתרבות במשך 7–10 ימים, מה שמאפשר השראה ומחקר של דלקת רקמת השומן כפי שהיא מתרחשת במהלך האכלה עתירה שומן.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
מודל עכבר אקס ויבו לדלקת רקמת שומן בדיאטה עתירה שומן
* These authors contributed equally
במאמר זה
סיכום
תקציר
פרוטוקול זה מתאר מודל עכבר אקס ויבו שמסכם תכונות תאיות ודלקתיות נבחרות שנצפו ברקמת השומן הויסרלית (VAT) לאחר האכלה בתזונה עתירה שומן (HFD), ללא התערבות תזונתית ב-vivo. צמחים קטנים עם VAT מעכברים רזים מגודלים במשך 7–10 ימים, שבמהלכם הם מפתחים באופן ספונטני פנוטיפ דלקתי הדומה מאוד ל-VAT של בעלי חיים שמוזנים ב-HFD. חשוב לציין שהמודל שומר על ארכיטקטורת רקמת השומן (AT), ומאפשר חקירת תהליכים דלקתיים בהקשר פיזיולוגי רלוונטי. במהלך התרבית, מופיעים סימנים מרכזיים של דלקת הקשורה להשמנה, כולל היווצרות מבנים דמויי כתר (CLS), הצטברות של מקרופאגים מופעלים מטבולית (MMes), והגברת ייצור הציטוקינים הדלקתיים. למרות מוות של שומנים, גורמים נוספים לדלקת הקשורה להשמנה, כולל גורמי לחץ מטבוליים כגון חומצות שומן רוויות, שינוי בטיפול בשומנים, עודף גלוקוז, לחץ חמצוני, היפוקסיה, חוסר איזון אדיפוקיני ואיתות פרקריני של אדיפוציטים–תאי חיסון, יכולים להיות מיוצגים חלקית במודל. המערכת תומכת במגוון רחב של יישומים במורד הזרם, כולל הדמיה חיה, ציטומטריית זרימה, PCR כמותי, ELISA, צביעת חיסון וריצוף RNA בתאי גדול או חד-תאים. בנוסף, ניתן ליישם טיפולים פרמקולוגיים ומבוססי ציטוקין כדי לחקור מסלולי איתות ותגובות ספציפיות לסוג התא. המודל הניתן להתאמה אישית בקלות הזה תואם את עקרונות 3R על ידי הפחתת השימוש בבעלי חיים למחקרים תזונתיים בתוך החיים . המודל ניתן לשחזור, חסכוני ופשוט ליישום, ומספק פלטפורמה גמישה לחקר מוות של שומנים, דינמיקת תאי החיסון ואסטרטגיות טיפוליות בדלקת AT.
מבוא
רקמת שומן (AT) היא איבר פעיל מטבולית המורכב מכ-20% שדיפוציטים ותערובת הטרוגנית של תאי חיסון, פיברובלסטים, תאי קדם ותאים וסקולריים בבני אדם1. AT מסווגת לרקמת שומן לבנה חד-לוכלית (WAT), רקמת שומן חומה רב-לוקולרית (BAT), ורקמת שומן בז' ביניים, המשקפת הטרוגניות בהרכב, תפקוד ומיקום אנטומי. WAT מתפזר בין מחסני שומן תת-עוריים (SCAT), ויסרלי (VAT), פריוסקולריים ומח עצם, השונים במקור התפתחותי, פרופילי ביטוי גנים ותפקוד מטבוליזמי. מעבר לתפקידו באחסון השומנים, AT מתפקד כאיבר אנדוקריני על ידי הפרשת ציטוקינים, הורמונים ואדיפוקינים2. בהשוואה ל-SCAT, מע"מ פעיל יותר מבחינה מטבולית ומועשר בתאים דלקתיים, מה שהופך אותו לרלוונטי במיוחד למחקרים של דלקת AT ומחלות מטבוליות כגון סוכרת סוג 2, 3,4,5.
AT הוא רגולטור מרכזי של בריאות מטבולית ומשחק תפקיד מרכזי בהשמנה, הקשורה למחלות נלוות רבות. השמנה מעודדת היפרטרופיה של השומנים, היפרפלזיה והתרבות6, בעוד שהרחבת AT ודלקת קשורות קשר חזק להיפרגליקמיה, היפראינסולינמיה, היפרטריגליצרידמיה ופגיעה בסבילות לגלוקוז3. התרחבות ה-AT נחשבת מלווה בעלייה בתמותה של שומני הדם, עם כ-10% תחלופה תאית בשנה7, מה שמפעיל גיוס מקרופאגים חיוני לפינוי רקמות ולעיצוב מחדש8. מכיוון שהשומניות גדולות משמעותית (100–200 מיקרון) ממאקרופאג'ים, פגוציטוזיס יעיל על ידי תאים קטנים פי חמישה הוא מאתגר, ובכך פוגע בהומאוסטזיס הרקמתי ומקדם דלקת AT כרונית9. מקרופאגים של רקמת שומן (ATMs) מתווכים את ניקוי החומרים הגוססים המוגדלים או על ידי התמזגות לתאים ענקיים מרובי גרעינים (MGCs) או על ידי יצירת מבנים דמויי כתר (CLS) סביב שדיפוציטים מתים ופירוקם באמצעות אקזוציטוזה ליזוזומלית 10,11,12. שפע CLS מתאם לדלקת הקשורה להשמנת יתר11,13.
ב-ATs בריאים, ATMים הם בעיקר מקרופאגים אנטי-דלקתיים דמויי M2, בעוד שהשמנה מקדמת מעבר לפנוטיפ פרו-דלקתי דמוי M114,15. תת-קבוצות נוספות מובחנות מכאנית של מקרופאג'ים, כולל מקרופאגים מופעלים מטבולית (MMes) ומקרופאגים קשורים לליפידים (LAMs), שממלאים תפקידים חשובים בניקוי שדיפוציטים מתים באמצעות אקסוציטוזה ליזוזומלית 16,17,18.
כדי לחקור דלקת ב-AT בסביבה רב-תאית פיזיולוגית רלוונטית, הפרוטוקול הקים מודל עכבר ex vivo המבוסס על תרביות אקספלאנט אורגנוטיפיות של VAT שמקורן בעכברים רזים. צמחי מע"מ שגודלו במשך 7–10 ימים מפתחים פנוטיפ דלקתי הדומה לזה שנצפה לאחר לפחות 12 שבועות של האכלה בתזונה עתירת שומן (HFD) ביחס להיווצרות CLS, פנוטיפ מקרופאגים וייצור ציטוקינים דלקתיים 9,19. חשוב לציין שגישה זו מפחיתה את השימוש בבעלי חיים, מבטלת את הצורך באישור התערבות תזונתית, ותורמת לעקרונות 3R על ידי הפחתת התלות במחקרי התערבות תזונתית ארוכי טווח. בהשוואה למערכות תרביות תאים דו-ממדיות (2D) קונבנציונליות, כגון מודלים של תרבית תא יחיד (למשל, תאי 3T3-L1 או תרביות שומן ראשוניות), שיטה זו שומרת על מורכבות הרקמה וגיוון תאי, ובכך מאפשרת חקירת אינטראקציות פיזיולוגיות בין תאים, כולל בין תאי חיסון לשומן.
צמחי AT מגודלים תואמים למגוון רחב של גישות אנליטיות. הדמיה קונפוקלית חיה מאפשרת ניטור הצטברות ATM, יצירת CLS ויצירת MGC 9,19. עיכול קולגנאז מאפשר בידוד חלק כלי הדם הסטרומלי (SVF) לניתוחי זרימה ציטומטרית, כולל בדיקות רבייה וקביעת פנוטיפים דמויי M1, M2 או MMe12. ניתוחי ביטוי גנים, כולל PCR כמותי (qPCR) וריצוף RNA, יכולים להתבצע על אקספלנטים שלמים, תאי SVF או מקרופאגים ממוינים9. ביטוי חלבונים ופעילות אנזימטית ניתנים להערכה באמצעות Western bloting או ELISA12,20,21, בעוד שארכיטקטורת הרקמה והביטוי של הסמנים ניתנים להמחשה באמצעות צביעה מלאה ואימונופלואורסצנציה 9,22. בנוסף, התערבויות פרמקולוגיות וגנטיות, כולל דלדול ATM וטיפול בציטוקינים, הן ישימות בקלות 21,23,24.
לסיכום, מודל העכבר אקס ויבו זה של דלקת AT דמוית HFD מאפשר חקירת מוות של שומניות, תצפית ישירה בשטח על התנהגות תאית, ומניפולציות פרמקולוגיות או גנטיות הרלוונטיות לאימונולוגיית AT (איור 1).
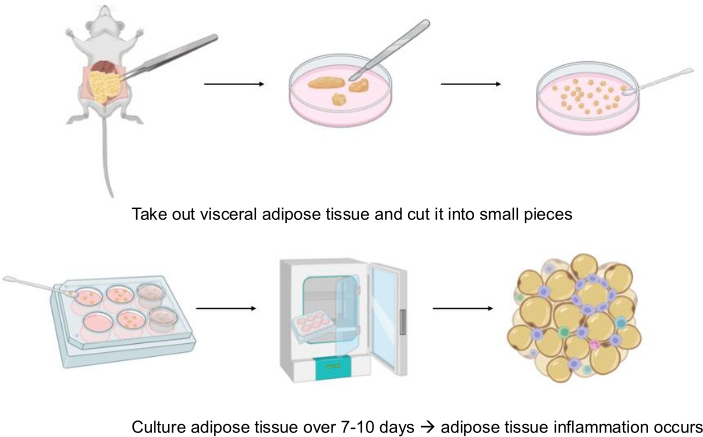
איור 1: סיכום גרפי של תהליך העבודה. רקמת שומן ויסרלית (AT) מבודדת מעכברים, נחתכת לשתילים קטנים ומגודלת למשך 7–10 ימים. במהלך תקופת התרבית, הצמחים האקספלאנטיים מפתחים פנוטיפ דלקתי, המאפשר חקר דלקת רקמת השומן בתנאי אקס ויבו מבוקרים. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
ניסויים בבעלי חיים בוצעו בהתאם להנחיות מוסדיות ולאומיות ואושרו על ידי הרשויות הרגולטוריות המתאימות. Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdעכברי עגבניות ("MacFat", RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549, Adipoq-iCreERT2: RRID:IMSR_JAX:025124, CAG-tdעגבנייה: RRID:IMSR_JAX:007914)27,28 שימשו לניסויים במיקרוסקופיה מייצגת. קו דיווח זה מאפשר ויזואליזציה של מקרופאגים לפי ביטוי GFP ושל שומניות באמצעות ביטוי tdTomato (ביטוי של tdTomatoes). מכיוון שהביטוי של tdTomato אובד לאחר מות השומן, ניתן לעקוב אחר חיוניות השומן במהלך הגידול. עכברי דיווח Csf1r-eGFP ("MacGreen", RRID:IMSR_JAX:018549)28 שימשו לוויזואליזציה של מקרופאגים וניתוחי ציטומטריית זרימה. עכברים C57BL/6J (RRID:IMSR_JAX:000664) שימשו לניסויים ללא הדמיה, כולל ניתוחי scRNA-seq ו-qPCR. כל הקווים הטרנסגניים נשמרו כעכברים הטרוזיגוטיים על רקע C57BL/6J.
ניסויים בבעלי חיים פעלו לפי 'עקרונות טיפול בבעלי חיים במעבדה' (פרסום NIH מס' 85e23, מתוקן 1985) וחוקים לאומיים ספציפיים ואושרו על ידי הרשויות המקומיות של מדינת סקסוניה: Landesdirektion בלייפציג, גרמניה (יישום ניסויי על בעלי חיים: TV11-21-MEZ). לפי הרשויות המקומיות, הניסויים המתוארים אינם מהווים ניסויים בבעלי חיים, שכן מצוין "אם חולייתן נהרג אך ורק כדי להשתמש באיבריו או ברקמותיו למטרות מדעיות, הדבר אינו נחשב לניסויים בבעלי חיים לפי סעיף 7(2) לחוק רווחת בעלי החיים (TierSchG), אלא להריגה לפי סעיף 4(3) לחוק רווחת בעלי החיים (TierSchG)." הריגת בעלי החיים חייבת להיות מדווחת ב'דיווח על בעלי חיים'. דוח זה כלול בבקשת הניסויים בבעלי חיים. ועדת האתיקה של הפקולטה לרפואה באוניברסיטת לייפציג אישרה גם היא את פרויקטי המחקר. בהתאם להנחיות היישום הניסויי לבעלי חיים TV11-21-MEZ, העכברים מוים בשל מנת יתר של איזופלורן האנסטטי בשאיפה. ריכוז גז אפקטיבי (5% בגז נשא O₂) מופק באמצעות מאייד איזופלורן. הליך המתת החסד מסתיים כאשר מאומת עצירת דם מוחלטת (היעדר נשימה [בדיקת נוצה] ודופק [מישוש]).
העכברים הוחזקו במתקן ספציפי מבוקר טמפרטורה (22 ± 2 מעלות צלזיוס), ללא פתוגנים באוניברסיטת לייפציג, בקבוצות אחות של 3–5 בעלי חיים במחזור אור/חושך של 12 שעות. לבעלי החיים הייתה גישה חופשית למים ולתפריט צ'או סטנדרטי (9% שומן קלורי; Sniff GmbH, גרמניה). בוצעו ניסויים מייצגים עם עכברים זכרים ונקבות. המגבים, הכימיקלים והערכות המשמשים בפרוטוקול מופיעים בטבלת החומרים.
1. הכנות
- הכינו תגובות וציוד
- הכינו את מדיום התרבית בתנאים סטריליים על ידי תוספת RPMI-1640 עם 10% סרום בקר עוברי (FBS) ו-1% תמיסת אנטיביוטיקה.
- חממו את מדיום התרבית ואת PBS סטרילי ל-37 מעלות צלזיוס.
- נקה את כל הציוד ואת אזור העבודה בתוך מכסה תרבית הרקמה עם 70% אתנול.
- הכינו בעלי חיים
- להקריב עכברים לפי ההנחיות המוסדיות. אופציונלית לשקול את החיות.
- הניחו את בעלי החיים בכוס זכוכית המכילה 70% אתנול.
- נגב את החלק החיצוני של בקבוק הזכוכית באתנול והעבר אותו למכסה תרבית הרקמות.
2. בידוד רקמת שומן (איור 2)
- הכינו את העכבר
- הנח את העכבר על הגב בצלחת זכוכית באמצעות מלקחיים קהים, או הצמיד אותו ללוח חיתול.
- הוסיפו שכבה דקה של PBS מחומם מראש לצלחת פטרי.
- החלף לכפפות חדשות.
- הרימו את עור הבטן התחתונה עם מלקחיים ובצעו חתך אופקי קטן באמצעות מספריים לפתיחת חלל הבטן.
- בצע חתך אנכי (~2 ס"מ מהזנב לרוסטרל) שמתארך מהחתך הראשוני כדי לחשוף את האיברים הפנימיים.
- בודד את כרית השומן
- באמצעות מספריים קטנים וחדים ומלקחיים, מאתרים וכריתו את רקמת השומן הלבנה. השתמש במערכת מכשירים נפרדת כדי למנוע זיהום.
- עכברים זכרים: שומן הגונדלי מחובר רק לאפידידימיס ולאשך. הרימו בזהירות את כרית השומן וחתכו מעל האפידידימיס, או חתכו את האפידידימיס והאשך יחד עם שומן הגונדה, והסירו אותם לאחר מכן.
- עכברים נקבות: שומן הגונדלי מחובר לקרן הרחם ולשחלות ובולט יותר מאשר אצל זכרים. הרימו בזהירות את כרית השומן והכריתה לאורך קרן הרחם והשחלות.
- הניחו את כריות השומן המבודדות בצלחת פטרי הממולאת ב-PBS.
- הסר אפידידימיס שאריות, אשך, שחלות או כלי דם באמצעות להב גילוח.
- העבר את תחבושת השומן הנקייה לצלחת פטרי שנייה המכילה PBS מחומם מראש. אופציונלית, לשקול את הפדים השומנים.
הערה: שקילת כריות השומן לפני התרבית מאפשרת נרמול מסת הרקמה בין מצבי הניסוי.
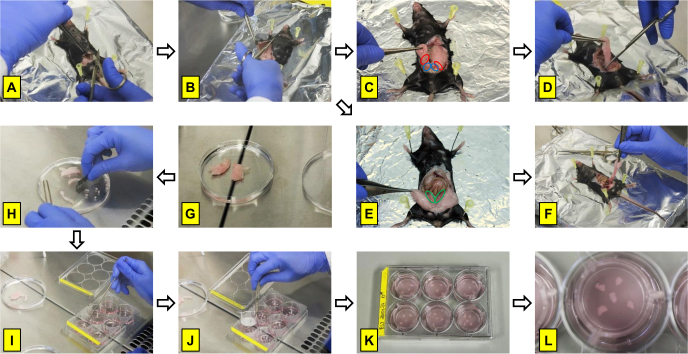
איור 2: בידוד ותרבות של רקמת שומן ויסרלית. (A,B) פתיחת חלל הבטן וחשיפת רקמת השומן הויסרלית. (C, D) בידוד רקמת השומן האפידידימלית מעכברים זכרים, השומן מחובר לאפידידימיס (עיגולים אדומים) ולאשך (עיגולים כחולים). (E, F) בידוד רקמת השומן הגונדלית מעכברים נקבות, השומן מחובר לקרן הרחם (עיגולים ירוקים) ולשחלות. (G, H) הכנה וגיזום של צמחי רקמת שומן. (I, J) העברת שתילים לבארות תרבית ומיקום מרכיבי תרבית תאים. (K, L) תמונות מייצגות של שתילים במהלך תרבית בלוחות בעלי 6 בארות. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של הדמות הזו.
3. הכנת צמחים וגידול
- הכינו אקספלנטים
אזהרה: להבי גילוח חדים ועלולים לגרום לפציעה. לטפל בזהירות ולהיפטר מהלהבים בהתאם לנהלי הבטיחות המוסדיים.- חתכו את כרית השומן לרצועות ואז לקוביות של כ-10 מ"מ 3 (~10 מ"ג לכל שתלון אקספלט) באמצעות להב גילוח.
- הקמת תרביות צמח
- הוסיפו 1–1.5 מ"ל מדיום תרבית לכל באר של צלחת 6 בארות.
הערה: לנרמל, יש להשתמש בכ-50 מ"ג רקמת שומן לכל 1 מ"ל מדיום תרבית. - העבר חמישה שתילים לכל באר באמצעות כף סטרילית או מרית.
- סדר את הצמחים החיצוניים באופן שווה בתבנית מעגלית.
- כסו את הצמחים עם תוספת תרבית תאים באמצעות מלקחיים סטריליים.
הערה: הימנעו מהחדרת בועות אוויר בעת מיקום האינסרטים, וודאו שהאקסטלנטים ממוקמים בתוכם. - דגרו את הצמחים בטמפרטורה של 37 מעלות צלזיוס, 5% CO₂ ו-21% O₂ למשך 7–10 ימים.
הערה: השתמש ב-PBS מחומם מראש ובמדיום תרבית כדי לשפר את חיוניות הרקמות. עבוד במהירות כדי למזער את הזמן שבו כריות השומן נשארות מחוץ לאינקובטור. הימנעו מזיהום בפרוות עכבר. אם השיער נדבק לרקמה, הסר אותו ושוטף את הרקמה עם PBS חמים.
- הוסיפו 1–1.5 מ"ל מדיום תרבית לכל באר של צלחת 6 בארות.
4. ניתוחים במורד הזרם
- לאחר תקופת התרביות של 7–10 ימים, יש לאסוף אקספלנטים, תאי שבר וסקולרי סטרומלי או סופרנטנטים לתרבות לניתוחים במורד הזרם, כולל מיקרוסקופיה, ציטומטריית זרימה, qPCR, ELISA או ריצוף RNA, לפי הצורך לנקודת הסיום הניסויית.
5. ניתוח סטטיסטי
- בצע ניתוחים סטטיסטיים באמצעות GraphPad Prism 10.2. סרקו מערכי נתונים של חריגים באמצעות מבחן ROUT (Q = 1%) והערכו נורמליות באמצעות מבחן שפירו–וילק (α = 0.05).
- השוו שתי קבוצות באמצעות מבחני t של סטודנטים מזווגים או מבחני זוגות תואמים של וילקוקסון, לפי הצורך. השוו מספר קבוצות באמצעות ANOVA חד-כיווני ואחריו מבחן פוסט-הוק של דאנט. יש לשקול הבדלים מובהקים סטטיסטית ב-p < 0.05.
- הצג נתונים כממוצע ± SEM. אלא אם צוין אחרת, הגדר n כמספר השכפולים הביולוגיים (עכברים בודדים).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
השריות הכללית של הרקמות נשמרה לאורך כל תקופת התרבית ונבדקה באמצעות מספר גישות משלימות. ניתן להעריך את שרי-הרקמות באמצעות מיקרוסקופיה קונפוקלית באמצעות צבעי חיוניות כגון קלצין25, צביעת נוגדנים נגד פרילפין להערכת שלמות ממברנת השומן17,26, או ביטוי חלבון מדווח טרנסגני בשומנים (שדיפוציטים). חיוניות ושלמות הרקמות נשמרו עד 14 ימים בתרבית, אם כי כיום נבדקים תקופות תרבית ארוכות יותר.
מוד...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
בהתחשב בעלייה בשכיחות העולמית של מחלות מטבוליות וסוכרת, הבנת המנגנונים שמאחורי דלקת רקמת השומן (AT) נותרה מטרה מחקרית חשובה. כדי לענות על צורך זה, פותחה מערכת תרבית ex vivo המאפשרת השראה וניתוח של דלקת AT בתנאים ניסיוניים מבוקריים.
דרישה קריטית של שיטה זו היא שימור חיוניות הרקמה לאורך כל תקופת התרבית. באמצעות גישות משלימות, הוכח כי שלמות ה-AT נשמרת עד 14 ימים בתרבות. בהשוואה לכך, שיטות AT explant שפורסמו בעבר בדרך כלל מראות עמידות רקמה לתקופות קצרות ב...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים שאין להם אינטרסים מתחרים.
תודות
המחברים מודים לקונסטנס הובוש ולפלוריאן קירמזה על הסיוע הטכני המצוין. ניתוחי ציטומטריית זרימה בוצעו ב-Core Unit Fluorescence Technologies באוניברסיטת לייפציג, בתמיכה טכנית של קתרין יגר ופיה גלוקנר. עבודה זו נתמכה על ידי Deutsche Forschungsgemeinschaft (DFG, קרן המחקר הגרמנית), פרויקט מספר 209933838 – SFB 1052 (פרויקט B09).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
```html
```
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| ערכת BD OptEIA Mouse TNF ELISA | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | ציטומטריה זרימה: 1:10000; מכתים: 1:2000 | Invitrogen | D3835 |
| אלבומין סרום בקר | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | מכתים: 1:100; ציטומטריה זרימה: 1:200 | BioLegend | 121610 |
| CD11c – BV605 | ציטומטריה זרימה: 1:100 | BioLegend | 117334 |
| CD16/32 | ציטומטריה זרימה: 1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | ציטומטריה זרימה: 1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | ציטומטריה זרימה: 1:400 | BioLegend | 102606 |
| CD45 – PE | ציטומטריה זרימה: 1:100 | BD Pharmingen | 555483 |
| ערכת Click-iT Plus EdU Alexa Fluor 350 Flow Cytometry | EdU: 5 µM | Invitrogen | C10632 |
| ליפוזומים קלודרונט | 500 µg/ml קלודרונט | Liposoma | |
| קולגנאז סוג 2 | 1 mg/ml, 315 U/mg | Worthington | LS004176 |
| ערכת CyQUANT LDH Cytotoxicity Assay | Invitrogen | C20301 | |
| DAPI | ציטומטריה זרימה: 0.2 µg/ml | Thermo Fisher | 62248 |
| אתנול | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | ציטומטריה זרימה: 1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | ציטומטריה זרימה: 1:200 | Invitrogen | 25-4801-82 |
| סרום עגל | 1.10 | Gibco | 10270106 |
| סרום עגל | 1.20 | Gibco | 10270106 |
| HBSS (-Mg, -Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | ציטומטריה זרימה: 1:20000; מכתים: 1:10000 | Invitrogen | H34477 |
| MAC-2 | מכתים: 1:1000 | Cedarlane | CL8942AP |
| Millicell Cell Culture Insert, 30 mm, hydrophilic PTFE, 0.4 µm | Merck Millipore | PICM0RG50 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| PBS (-Mg, -Ca) | Gibco | 14190169 | |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Penicillin/Streptomycin (10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxicon 5622 | 40 µM | Plexxicon Inc. | HY-114153 |
| RPMI-Media 1640 | עם 11 mM גלוקוז | Sigma Aldrich | R8758 |
| RPMI-Media 1640 | Sigma | R8758 | |
| TC-Insert for 6-well plates | Sarstedt | 83.3930.040 | |
| TPP tissue culture test plate 6 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| זינק כלורי | 0.8 mM | Sigma | Z0152 |
| זינק פורמלין | Polyscience | 21516-3.75 |
מקורות
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
