פרוטוקול זה מתאר את הבידוד, הטיהור והתרביות של תאי מיאלואיד/מיקרוגליה אנושיים בדרגת טוהר גבוהה מתוך רקמת מוח פוסט-מורטם שנלקחה בניתוח פתוח מהיר מאנשים עם ומבלי נשאי נגיף הכשל החיסוני האנושי 1 (HIV-1). הוא מספק פלטפורמה חזקה ex vivo לחקר הביולוגיה של תאי מיאלואיד/מיקרוגליה, מאגרים של HIV במוח, דלקת עצבית ואסטרטגיות לריפוי HIV.
מאמר שיטה
בידוד מיקרוגליה ממוח למחקר על התמדה של נגיף השפעת המחסור החיסוני האנושי 1 (HIV-1)
* These authors contributed equally
במאמר זה
סיכום
תקציר
ביססנו ועשינו אופטימיזציה לפרוטוקול חסון לבידוד, גידול וחקר של תאי מיאלואיד ראשוניים מהמוח האנושי (BrMCs) מרקמות מוח לאחר המוות שהושגו בניתוח פתולוגי מהיר מאנשים עם או בלי HIV-1 (HIV), שבהם >97.3% מ-BrMCs הם מיקרוגליה של המוח (MG). לפיכך, אנו מכנים BrMCs מבודדים אלה כ-MG או BrMCs/MG כדי לייצג טוב יותר את אוכלוסיות התאים. שיטה זו מאפשרת חקירה מקיפה ex vivo של הביולוגיה של המיקרוגליה, כולל תפקידם בשמירה על מאגרי HIV במוח, תיווך של דלקת עצבית (neuroinflammation) ותרומה לפגיעה נוירונלית, כמו גם הערכה של אסטרטגיות לריפוי HIV.
כדי לשמר את החיוניות התאית ואת שלמות ה-RNA והחלבונים, רקמות מוח נאספו בתוך 6 שעות לאחר המוות, בעקבות נתיחה למטרות מחקר שבוצעה במהירות. אזורים מרובים, כולל קליפת המוח הפרונטלית, הפריאטלית והאוקסיפיטלית, ההיפוקמפוס והגנגליונים הבסאליים, עובדו באמצעות עיכול אנזימטי ודיסוציאציה מכנית מבוקרת, ולאחר מכן באמצעות דחיסות סנטריפוגציה במדרג ריכוזים ליצירת תרחיפים חיים של תאים בודדים, תוך הסרה יעילה של שאריות מיאלין והמסה של תאי דם אדומים. לאחר מכן, תאי BrMCs/MG טוהרו באמצעות גישת בידוד דו-שלבית, המורכבת מ-CD3⁺ דילול תאי T ולאחריו CD11b⁺ העשרה באמצעות חרוזי מגנט כדי להבטיח טוהר וספציפיות.
תאי מיאלואיד מופקים תורבדו בתנאים מוגדרים בתוספת M-CSF כדי לשמר את החיוניות ואת השלמות התפקודית במהלך תרביות ex vivo ממושכות. פלטפורמה מותאמת זו מספקת תשתית אמינה וניתנת להרחבה לניתוחים מולקולריים, אימונולוגיים ווירוסים של מאגרי HIV השוכנים במוח ומנגנונים קשורים ב-BrMCs/MG.
מבוא
תאי מיאלואיד של המוח (BrMCs)/מיקרוגליה הם תאי החסינות המולדת העיקריים במערכת העצבים המרכזית (CNS)1,2,3. בתנאים בריאים, הם מנטרים את המוח באופן רציף ומסייעים במשימות כגון גיזום סינפטי, פינוי פסולת ותמיכה בנוירונים4,5,6. כאשר קיימת מחלה, המיקרוגליה מופעלת אימונולוגית, מה שמוביל לדלקת נוירונית (neuroinflammation), אשר ממלאת תפקיד חיוני בניוון עצבי בהפרעות שונות של ה-CNS7,8,9. במהלך זיהום ב-HIV-1 (HIV), ה-BrMCs/מיקרוגליה מהווים את מאגר ה-HIV העיקרי במוח, יחד עם תאי T של ה-CNS וייתכן שגם אסטרוציטים; אלו האחרונים ממלאים ככל הנראה תפקיד מינורי במאגרי HIV ב-CNS. מיקרוגליה מחבאות DNA פרו-ויראלי של HIV משולב המזוהה עם זיהום חבוי, אך שומרות על ביטוי HIV RNA ברמה נמוכה, למרות טיפול אנטי-רטרוביראלי (ART) יעיל10,11,12. זיהום HIV מתמשך ב-BrMCs/מיקרוגליה מוביל לדלקת כרונית ומקושר להפרעה נוירו-קוגניטיבית הקשורה ל-HIV (HAND) אפילו תחת ART מודרני, כפי שמעידים תסמינים קוגניטיביים, התנהגותיים ומוטוריים בעד 50% מהאנשים החיים עם HIV (PWH)13,14,15,16. לכן, הבנת התפקוד של מיקרוגליה המอดูה באופן מתמשך ב-HIV היא אחד המפתחות להבנת המנגנון המולקולרי של זיהום HIV וחבויותו, השתפות (crosstalk) של מיקרוגליה עם אסטרוציטים ותאים אחרים ב-CNS, פגיעה נוירונלית ותהליך המחלה של HAND, דבר שהוא קריטי למציאת יעדי טיפול נגד neuroHIV11,12,17.
עם זאת, קיימים אתגרים טכניים בחקר מיקרוגליה באמצעות רקמת מוח אנושית לאחר המוות. תכולת מילין גבוהה, במיוחד בחומר הלבן, עלולה ללכוד תאים ולחסום מסננים, מה שמפחית את התשואת התאים אלא אם כן המילין מוסר לפני סלקציה אימונו-מגנטית18,19. לאחר מותם של PWH, סממנים על פני השטח של התא, כגון TMEM119 ו-P2RY12, עלולים להתפרק, ובכך להקשות על זיהוי מדויק של המיקרוגליה20,21. בנוסף, תאים מיאלואידיים במוחות נגועים ב-HIV כוללים מונוציטים פריפריאליים ומקרופאגים תאוריים החולקים מספר סממנים משותפים עם מיקרוגליה; לכן, נדרשים שלבים נוספים כדי להעשיר את האוכלוסייה הטהורה של BrMCs, ובמיוחד את המיקרוגליה22,23.
הגישות הנוכחיות לבידוד מיקרוגליה אנושית אינן יעילות עבור רקמות לאחר המוות שנדבקו ב-HIV. מיון תאים מופעל פלואורסצנציה (Fluorescence-activated cell sorting) מספק תוצאות מקיפות, אך דורש ציוד יקר, לוקח זמן רב ומניב מספר תאים נמוך מכמויות קטנות של רקמות מוח אנושיות יקרות24,25. אימונו-פנינג (Immunopanning) הוא ספציפי, אך הוא אינו יכול לטפל בדגימות מהרבה אזורי מוח בו-זמנית ודורש זמן דגירה ממושך, דבר שאינו מתאים לרקמות לאחר המוות הדורשות עיבוד מהיר של הרקמה לאחר משלוח של לילה שלם26,27. כמו כן, אף אחת מהשיטות הללו אינה מאפשרת השגה של תאי T ושל תאי מיאלואידיים מאותה דגימה, דבר הדרוש לצורך פרופיל חיסוני מלא של תאי מערכת העצבים המרכזית (CNS) שנדבקו ב-HIV17,28.
פרוטוקול זה מספק גישה הדירה, אמינה ויעילה לבידוד והעשרה של מיקרוגליה ותאי מערכת חיסון אחרים של מערכת העצבים המרכזית (CNS) מתוך רקמות מוח אנושיות לאחר מוות שנדבקו ב-HIV. דיסוציאציה מכנית מבוקרת בשילוב עם עיכול אנזימטי עדין (למשל, TrypLE Express ו-DNase I) יכולה לשמר במידה רבה אנטיגנים על פני השטח ולמזער אגרגציה של תאים29,30. מיאלין מוסר באמצעות סנטריפוגה במדרג צפיפות של Percoll, ולאחריה הפרדה אימונומגנטית של תאי T מסוג CD3⁺ ותאי מיאלואיד מסוג CD11b⁺31,32. חשוב לציין כי השימוש בתנאים אנזימטיים עדינים משמר את הסמנים המיאלאואידיים המרכזיים, כולל CD11b ו-CD68, כמו גם סמנים ביולוגיים ספציפיים למיקרוגליה כגון TMEM119 ו-P2RY12, מה שמאפשר לנו לאפיין במדויק תאי CNS ולבצע ניתוחים של מסלולי איתאות במורד33. גישת הבחירה הדו-שלבית מייצרת גם פракציה נקייה מאוד של תאי T מסוג CD3⁺ המתאימה למחקרים וירולוגיים ואימונולוגיים, דבר הרלוונטי במיוחד ל-NeuroHIV, בהינתן תפקידם של תאי T במאגר הווירוס במערכת העצבים המרכזית ובפגיעה נוירולוגית הקשורה ל-HIV לאחר חדירת תאי T למוח34,35.
באופן כללי, גישה רצפית זו בת שני שלבים — דלטור של תאי CD3⁺ T בתחילה, ולאחריה העשרה של תאי מיאלואיד CD11b⁺ מהפרק השלילי ל-CD3 — משפרת הן את טהרת התאים והן את תנובת התאים ממערכת העצבים המרכזית (CNS), תוך מקסימיזציה של השימוש בדגימות רקמה יקרות, מוגבלות ובעלות ערך אלו. התאים המבודדים מתאימים למגוון רחב של יישומים המשכיים, כולל ריצוף RNA של תאי קבוצה (bulk) ותאי יחיד (single-cell), ציטומטריה של זרימה, בדיקות תפקודיות ואנליזות וירולוגיות, כולל כימות DNA/RNA של HIV ובדיקות צמיחה ויראלית (viral outgrowth assays) לקביעת מאגרי נגיפים בעלי יכולת שכפול בתוך תאי חיסון תושבי ה-CNS17,36,37.
פרוטוקול זה תואם למעבדות המצוידות לעיבוד רקמת מוח לאחר המוות בתנאי BSL-2+, מכיוון שחולים רבים עם HIV (PWH) נמצאים תחת דיכוי באמצעות ART או עם הפסקה קצרת מועד של ART בסוף חייהם. הוא דורש רק פלטפורמות סטנדרטיות של הפרדה אימונומגנטית וציטומטריית זרימה כדי לאמת את הסגוליות של BrMCs/מיקרוגליה לאחר הבידוד. באמצעות שינויים מינוריים, ניתן להתאימו גם לחקר מחלות של מערכת העצבים המרכזית (CNS) כגון מחלת אלצהיימר, טרשת נבחרה, COVID19 ממושך ופגיעת מוח טראומטית38,39,40. פרוטוקול זה עבר אופטימיזציה גם עבור בידוד תאי מוח מפרימטים שאינם בני אדם (NHPs) שנדבקו ב-SIVmac251 או SIVmac23912,41, וכן עבור מודלים של עכברים אנושייים של זיהום HIV או השקיעה (latency), המספקים מודל רלוונטי פיזיולוגית של זיהום HIV במוח. בניגוד למוח אנושי, מודלים חייתיים אלו נגישים יותר ומציעים משאב משלים בעל ערך למחקרים מכניסטיים ותרגומניים של זיהום HIV, השקיעה של HIV ו-neuroHIV הנלווה לכך.
פרוטוקול
הערה: יש לטפל בכל רקמות אדם/NHP תחת תנאי BSL-2. השתמשו בציוד מגן אישי מתאים, הכולל חלוק, כפפות, מסכה ומגן פנים, בעת טיפול ב-Percoll, בבופר ACK וב-DMSO. השליכו פסולת כימית וביולוגית בהתאם להנחיות המוסדיות. שטפו את כל הציוד החד-פעמי ששימש במהלך פירוק הרקמה, כגון סכיני ניתוח, פיפטות וצלחות פטרי, ב-10% bleach לפני השליכתם לשקיות פסולת ביולוגית. שטפו ציוד רב-פעמי, כגון פינצטות ומספריים, ב-10% SDS לפני השטיפה והסטריליזציה באוטוקלבה.
1. איסוף רקמת מוח
- דגימות אנושיות
הערה: רקמות אנושיות ששימשו במחקר זה הושגו תחת פרוטוקולים שאושרו על ידי ועדת ההגנה על נבדגי אנוש (IRB) של אוניברסיטת קליפורניה, סן דייגו (UCSD; IRB No. 160563)12. התורמים האנושיים היו אנשים החיים עם HIV שקיבלו טיפול אנטי-רטרוביראלי (ART). מאפייני תורמים מרכזיים, כולל גיל, מין, מרווח לאחר המוות (PMI) ומצב ה-ART, מסוכמים כאן בקצרה, ומאפיינים אלו תוארו בקפידה בפרסום הקודם12.- אסוף רקמות בתוך ≤6 h מהמוות כדי לשמר את חיוניות התאים ואת שלמות ה-RNA, ושלח אותן למעבדת העיבוד בתוך 24 h.
- דגימות מפרימטים שאינם בני אדם (NHP)
הערה: קופים מסוג רזוס (Macaca mulatta) שוכנו במרכז הלאומי למחקר פרימטים של אמורי (ENPRC, PROTO201700286) או במרכז הלאומי למחקר פרימטים של קליפורניה (CNPRC, UCD IACUC #22832). הטיפול בבעלי החיים וההליכים הניסויים בוצעו בהתאם לתקנות של ועדות המוסדיות לטיפול ושימוש בבעלי חיים (IACUCs) הרלוונטיות ועמדו בהנחיות המוסדיות והפדרליות. כל מתקני הטיפול בבעלי החיים מוסמכים על ידי משרד החקלאות של ארה"ב והאיגוד להערכה והסמכה של טיפול בבעלי חיים במעבדות בינלאומיות (AAALAC).- אסוף רקמות מיד לאחר נתיחה12.
- איסוף רקמות
הערה: בצע את כל פעולות הטיפול בכלי שקילה שקולל מראש והונח על קרח.- אסוף 2–20 g לכל אזור במוח (למשל, קליפה פרונטלית, פריאטלית, אוקסיפיטלית, היפוקמפוס, גרעינים בסיסיים), בהתאם לזמינות הרקמה.
- הנח את הרקמות ב-DMEM/F12 קר מאוד בתוספת ART: 100 nM Nevirapine, 200 nM Raltegravir, 25 nM Darunavir. שמור את הרקמות בטמפרטורה של 4 °C.
- תנאי הובלה
- אחסן את הדגימות בשפופרות אטומות בטמפרטורה של 4 °C על קרח.
- העבר את השפופרות באמצעות צוות מוסמך תחת תקנות UN3373 Category B12. שלח את הדגימות למעבדת העיבוד במשלוח לילה אחת על קרח.
2. הכנת רקמה
- העבירו את הרקמה למבחנות של 50 mL. שטפו את הרקמה 10–15 פעמים על ידי היפוך עדין של המבחנות עם 20–40 mL של HBSS קר עם DNase (10 U/mL) עד שהנוזל העליון יהיה צלול.
הערה: שלב זה מסיר דם, שרידים ומזהמים, לכן ודאו שהנפח מספיק כדי שחלקי הרקמה יוכלו לנוע בחופשיות במהלך השטיפה. - הסירו והשליכו את קרומי המוח (meninges) וכלי דם גדולים באמצעות פינצטה סטרילית.
- העבירו את הרקמה לצלוחית פטרי חדשה ורשמו את משקל הרקמה (ללא המיכל) לפי אזורי המוח.
- קרעו את הרקמה לשברים של ~1–2 mm באמצעות זוג פינצטות סטריליות בתוך ~10 mL של HBSS + DNase I (10 U/mL).
הערה: ניתן לבצע את הקיצוץ בצלוחית הפטרי באמצעות סכין מנתחים (scalpel).
3. עיכול אנזימטי
- הכינו את תערובת העיכול על ידי ערבוב של 10 mL של אנזים רקומביננטי לפירוק תאים בריכוז 1x ו-DNase I (בריכוז סופי של 10 U/mL).
- חממו מראש את השייקר הסיבובי ל-37 °C ואת האנזים הרקומביננטי לפירוק תאים עם DNase I (בריכוז סופי של 10U/mL) באינקובטור בטמפרטורה של 37 °C.
- העבירו את הרקמה בתערובת העיכול משלב 3.1 לבקבוקנים (T150 לנפחים > 50 mL; בקבוקנים קטנים יותר אם הנפח <50 mL) והדגירו בשייקרים סיבוביים ב: 37 °C, 150 rpm, למשך 30 דקות.
- בצעו טריטורציה בעדינות באמצעות פיפטות של 10 mL ולאחר מכן 5 mL, על ידי שאיבה ושחרור חוזר של הנוזל.
הערה: הימנעו מפיפטור אגרסיבי. - הדגירו למשך 5 דקות בטמפרטורת החדר כדי לאפשר לרקמה לשקוע.
- איסוף תאים
- אספו את העילוי לפitonitis של 50 mL; זהו איסוף מס' 1. הוסיפו 10% FBS לעילוי שנאסף כדי לעצור את פעילות האנזים.
- שחזרו את הרקמה שנותרה ב-HBSS + DNase I (10U/mL) + 10% FBS (במנור של 10 mL לכל גרם רקמה). בצעו טריטורציה בעדינות וסננו דרך מסננים של 70–100 µm.
הערה: אם העיכול האנזימטי היה מספיק, כל הרקמה תעבור דרך המסנן. - צנטריגו ב-500 × g, בטמפרטורת החדר, למשך 10 דקות; זהו איסוף מס' 2.
הערה: כדי למקסם את השחזור, אפשרו לסספנסיה לשקוע והעבירו רק את העילוי לפitonitis חדש.
- עיבוד סופי
- צנטריגו את הדגימות שנאספו (C1 ו-C2) ב-500 × g למשך 10 דקות.
- שפכו את העילoyens. איספו את משקעי התאים מ-C1 ו-C2 לפitonitis אחד.
4. הסרת שיירי מיאלין (מדרג Percoll)
- הכינו Percoll איזוטוני (SIP) על ידי ערבוב של 9 חלקים של Percoll עם חלק אחד של 10x HBSS. הכינו כמות מספיקה כדי להגיע ל-~2.5 mL/g של רקמה.
- הכינו תמיסת עבודה של 35% Percoll על ידי ערבוב של 3.5 mL של SIP עם 5.5 mL של 1x HBSS. הכינו כמות מספיקה כדי להגיע ל-~4.5 mL/g של רקמה.
- הפרדה בצפיפות
- סספנדו מחדש את משקע התאים שהתקבל משלב 3.7.2 ב-35% Percoll. השתמשו בכ-4.5ml של 35% Percoll לכל גרם ממשקל הרקמה המקורי (כלומר, משקל הרקמה שנמדד לפני הדיסוציאציה)
- הערה: סספנדו את התאים עם 35% Percoll במבחנה של 50 mL (מקסימום 30 mL למבחנה). אם הרקמות גדולות, חלקו את התאים למספר מבחנות של 50 mL.
- הוסיפו בזהירות שכבה של 10 mL של 1x HBSS מעל לכל מבחנה. דגרו למשך 5 דקות על קרח או ב-4 °C.
- סבבו בצנטריפוגה ב-800 × g, למשך 45 דקות, ב-4 °C (ללא בלימה במהלך ההאטה).
- השבת שכבות
- שפכו בזהירות את העליון ואת שכבת המיאלין מבלי להפריע לממשק התחתון.
- אספו את המשקע ואת הממשק (מתחת לשכבת המיאלין המכילה תאי מוח מעורבבים ואת פראקציית ה-Percoll) למבחנה קונית חדשה של 50 mL כדי למנוע מעבר של שיירי רקמה.
- דילול ושטיפה
- הוסיפו HBSS ביחס של 3:1 (למשל, 30 mL של HBSS לכל 10 mL של הסספנזיה שנאספה) כדי לדלל את ה-Percoll (דילול של ~3x).
- סבבו בצנטריפוגה ב-1,000 × g, למשך 10 דקות ב-4 °C (השתמשו בבלימה ובהאצה מלאות).
- הסירו את העליון לחלוטין.
- ליזיס של RBC וספירת תאים
- טפלו בלוח התאים משלב 4.5.3 עם ACK buffer (5 mL, 10 דקות, 37 °C).
- ספרו את התאים החיוניים באמצעות Trypan blue.
- הערה: תפוקה צפויה: ~0.1–1 × 10⁶ תאי CNS לגרם רקמה, בהתאם למצב הרקמות.
- הוסיפו 10 mL של PBS כדי לנטרל את ה-ACK lysis buffer. סבבו בצנטריפוגה ב-500 × g למשך 5 דקות.
הערה: שלב עצירה אופציונלי: ניתן לתרבות את התאים למשך לילה לפני המיון בצפיפות של 0.5–1 × 10⁶ תאים/mL של מצע (DMEM/F-12, תוסף גלוטמין עם sodium Pyruvate (500 mL), 10% FBS שעבר נטרול חום, 1x HEPES buffer solution, 1x Antibiotic-Antimycotic (5.5 mL של מלאי 100x), 10 ng/mL MCSF (מלאי 1,000x).
לאחר השלמת שלבי הדיסוציאציה של הרקמה, ליזיס של RBC, ספירת תאים ושלב התרבית הלילית האופציונלי המתוארים לעיל, בודדו אוכלוסיות של תאי CD3+ ו-CD11b+ באמצעות ערכות בידוד תאים זמינות מסחרית בה accordance עם הוראות היצרן. מידע מפורט לגבי הערכות, ריאגנטים והליך הבידוד המלא מופיע בטבלת החומרים, וסקירה קצרה של זרימת העבודה של הבידוד מוצגת להלן.
5. בידוד תאי T מסוג CD3⁺ (ברירה חיובית)
הערה: בידוד CD3+ מתחילים בתרחיף תאים בודדים שהוכן, ראשית באמצעות ערכה לבחירה חיובית אימונומגנטית בפורמט שחרור עבור CD3 (ראו את ה- טבלת חומרים). שמור את שני ה-CD3+ ו-CD3- שברים שהופקו מחלק זה. ה-CD3- הfracion נדרש לשלב 6.
- הכנת באפר השחרור.
- הכינו באפר שחרור 1x על ידי דילול רכז באפר השחרור 40x בתוך באפר להפרדת תאים ביום השימוש, ושמרו אותו בטמפרטורה של 4–6 °C או על קרח.
הערה: הכינו 2.5 mL של באפר שחרור 1x עבור כל דגימה המיועדת לעיבוד.
- הכינו באפר שחרור 1x על ידי דילול רכז באפר השחרור 40x בתוך באפר להפרדת תאים ביום השימוש, ושמרו אותו בטמפרטורה של 4–6 °C או על קרח.
- הכנת דגימת התאים וסימון באמצעות תערובת הבחירה.
- סספנדו מחדש את משקע התאים משלב 4.6.3 בריכוז של 1 × 10⁸ תאים/mL בתוך באפר להפרדת תאים בתוך מבחנת פוליסטירן בעגולית בנפח 5 mL.
- הוסיפו לדגימה את תערובת הבחירה ל-CD3 בנפח של 100 µL לכל mL דגימה. ערבבו את הדגימה בעדינות והד기로 למשך 3 דקות בטמפרטורת החדר.
- סימון הדגימה באמצעות חלקיקים מגנטיים.
- בצעו וורטקס לחלקיקים המגנטיים למשך 30 שניות מיד לפני השימוש. הוסיפו את החלקיקים המגנטיים לדגימה בנפח של 100 µL לכל mL לכל דגימה. ערבבו את הדגימה בעדינות והד기로 למשך 3 דקות בטמפרטורת החדר.
- הביאו את נפח הדגימה הכולל ל-2 mL באמצעות באפר להפרדת תאים וערבבו על ידי פיפטינג עדין של הסספנזיה למעלה ולמטה שתיים או שלוש פעמים.
- בידוד תגובת CD3+ באמצעות הפרדה מגנטית.
- הניחו את מבחנת הדגימה ללא הפקק בתוך המפריד המגנטי לתאים והד기로 למשך 5 דקות בטמפרטורת החדר.
- הערה: תאים הקשורים לחלקיקים המגנטיים מהווים את פראקציית CD3+ ונשארים צמודים לדופן המבחנה בתוך השדה המגנטי; הנוזל העליון שאינו קשור מהווה את פראקציית CD3-.
- מבלי להוציא את המבחנה מהמפריד המגנטי, העבירו בפיפטה את הנוזל העליון למבחנה קונית נקייה ומסומנת בנפח 15 mL המיועדת לפראקציית CD3-.
- הוציאו את המבחנה מהמפריד המגנטי וסספנדו מחדש את התאים שנותרו בעדינות ב-2 mL של באפר להפרדת תאים.
- חזרו על שלבים 5.4.1 עד 5.4.3 עבור סך של שלוש הפרדות מגנטיות של 5 דקות, תוך איסוף כל הנוזלים העליונים לתוך אותה מבחנה של פראקציית CD3-.
- שחרור פראקציית CD3+ מהחלקיקים המגנטיים.
- הוסיפו 2.5 mL של באפר שחרור 1x (שהוכן בשלב 5.1.2) לתאים שנותרו וערבבו על ידי פיפטינג עדין של הסספנזיה למעלה ולמטה פעמיים עד שלוש פעמים. הד기로 את הסספנזיה למשך 3 דקות בטמפרטורת החדר.
- הניחו את המבחנה ללא הפקק בתוך המפריד המגנטי לתאים והד기로 למשך 5 דקות בטמפרטורת החדר.
- מבלי להוציא את המבחנה מהמפריד המגנטי, העבירו בפיפטה את הנוזל העליון למבחנה קונית נקייה ומסומנת בנפח 15 mL המיועדת לפראקציית CD3+.
הערה: באפר השחרור מנתק את החלקיקים המגנטיים מהתאים המסומנים: הנוזל העליון שמתקבל הוא פראקציית CD3+ מטוהרת, בעוד שהחלקיקים המגנטיים השאריתיים נשארים קשורים לדופן המבחנה בשדה המגנטי ומושלכים.
- ספירת תאים ושימור בהקפאה
- ספרו את התאים ושמרו את מנת ה-CD3+ על ידי הקפאה מהירה של מנות ב-80 °C- לאחר שימור בהקפאה של שאר התאים בתערובת קריו (90% FBS + 10% DMSO) למשך 24 שעות במצע הקפאה מבוסס איזופרופנול, ולאחר מכן העבירו את הדגימה לחנקן נוזלי.
6. בידוד תאי מיאלואיד CD11b⁺ (מתוך פרקציית CD3⁻)
הערה: ה-CD3- את הפראקציה שנשמרה משלב 5.4.4 העבירו שלב שני של סלקציה חיובית אימונו-מגנטית כדי לבודד CD11b+ תאי מיאלואיד באמצעות מיקרו-חרוזיים מגנטיים נגד CD11b ומפריד מגנטי בפורמט של עמודה (ראה את ה- טבלת חומרים).
- הכינו את בופר ההפרדה וקבעו את מספר התאים.
- הכינו את תמיסת ההפרדה המבוססת על BSA בריכוז 1x על ידי דילול הריכוז 20x בתמיסת שטיפה איזוטונית, ושמרו את התמיסה שהוכנה בקירור (4–8 °C) עד לשימוש.
- קבעו את מספר התאים הכולל בפרקציית ה-CD3 באמצעות המוציטרומטר (hemocytometer) או סופר תאים אוטומטי.
- סמנו את התאים באמצעות חרוזי מיקרו-מגנטיים נגד CD11b.
- סנטריפוגו את תרחיף התאים במהירות של 300 × ג במשך 10 דקות ושאבו את העילאי באופן מלא.
- השעה מחדש את משקע התאים ב- 80 µL של בופר הפרדה מבוסס BSA בריכוז 1x עבור כל 1 × 10⁷ סה"כ תאים.
- הוסף 20 µL של חריזות מיקרו-מגנטיות אנטי-CD11b לכל 1 × 10⁷ סך התאים, ערבב היטב והדגר למשך 15 דקות ב-4–8 °C.
- הערה: דגירה על קרח רטוב במקום במקרר עשויה לדרוש זמן דגירה ממושך יותר. דגירה בטמפרטורות גבוהות יותר או למשך זמן ארוך מהזמן המומלץ עלולה להגביר את הסיכון לסימון תאים לא ספציפי.
- שטפו את התאים המסומנים על ידי הוספה של 1 מ"ל של תמיסת הפרדה (separation buffer) בריכוז 1x לכל 1 × 10⁷ תאים, סבב במערך צנטריפוגה במהירות 300 × ג' למשך 10 דקות, ושאבו את העלייה (supernatant) באופן מלא.
- השעה מחדש עד ל-1 × 10⁸ סך התאים ב- 500 µL של באפר הפרדה.
- בצע הפרדה מגנטית מבוססת עמודה.
- הנח עמודת הפרדה מגנטית לתוך המפריד המגנטי והשג שיווי משקל על ידי שטיפה עם 500 µL של בופר הפרדה 1x עבור עמודה בנפח קטן, או 1 מ"ל של בופר הפרדה 1x עבור עמודה בנפח גדול; השליכו את נוזל השטיפה.
הערה: השתמשו בעמודה בעלת נפח קטן כאשר המדגם מכיל מספר תאים כולל נמוך. השתמשו בעמודה בעלת נפח גדול עבור מדגמים המכילים מספר תאים כולל גבוה, כגון תכשירים חיסוניים המופקים מהטחול או תכשירים חיסוניים משולבים. - הניחו מבחנה נקייה בעלת תחתית עגולה מCpolystyrene בנפח של 5 מ"ל מתחת לעמודה שהושגה שיווי משקל, והפעילו את ה- 500 µL (עמודה בנפח קטן) או 1 מ"ל (עמודה בנפח גדול) של תרחיף תאים מסומן לחלק העליון של העמודה.
- לאחר שהמדגם נכנס במלואו לעמודה, יש לשטוף את העמודה שלוש פעמים, תוך הוספת 500 µL של בופר הפרדה (separation buffer) בריכוז 1x לכל שטיפה עבור עמודה בנפח קטן, או 1 מ"ל לכל שטיפה עבור עמודה בנפח גדול. יש להוסיף כל שטיפה עוקבת רק לאחר שמאגר העמודה התרוקן.
הערה: השאיפה המשולבת שנאספה בשלבים 6.3.2 ו-6.3.3 מהווה את תאי ה-CD11b שאינם מסומנים- שבר - הוציאו את העמודה מהמפריד המגנטי והניחו אותה לתוך מבחנה נקייה ומסומנת של 5 מ"ל מפוליסטירן המיועדת עבור CD11b+ שבר
- העבירו בפיפטה 1 מ"ל (עמודה לנפח קטן) או 2 מ"ל (עמודה לנפח גדול) של תמיסת הפרדה (separation buffer) בריכוז 1x אל חלקו העליון של העמודה, ושטפו מיד את התאים המסומנים אל מבחנת האיסוף על ידי לחיצה חזקה על הבוכנה המסופקת עם העמודה.
- הנח עמודת הפרדה מגנטית לתוך המפריד המגנטי והשג שיווי משקל על ידי שטיפה עם 500 µL של בופר הפרדה 1x עבור עמודה בנפח קטן, או 1 מ"ל של בופר הפרדה 1x עבור עמודה בנפח גדול; השליכו את נוזל השטיפה.
- כימות ועיבוד המשך של CD11b+ שברים
- ספרו את התאים משני הפракציות (CD11b+ ו-CD11b-) ואחסן את ה-CD11b- חלוקה למנות (aliquoting) באמצעות הקפאה מהירה (snap-freezing) ב-80 °C לאחר שימור בקירור (cryopreservation) של התאים הנותרים בתערובת הקפאה (90% FBS + 10% DMSO) למשך 24 שעות במדיום הקפאה המבוסס על איזופרופנול, העבירו את הדגימה לחנקן נוזלי.
- השתמש ב-CD11b+ תאים לניסויים המשכיים.
תוצאות
תהליך העבודה המותאם המתואר בפרוטוקול זה מאפשר בידוד הדיר שמיש של תאי T מועשרים מאוד ושל BrMCs/מיקרוגליה מרקמות מוח אנושיות לאחר המוות שהיו נגועות ב-HIV. ביצוע מוצלח של הפרוטוקול מאומת באמצעות סדרה של נקודות בקרה לאיכות, הכוללות הערכת חיוניות תאים, כימות של התוצר ואפיון אימונופנוטיפי בשלבים מרכזיים. תוצאות מייצגות מניסוי מוצלח מתוארות להלן.
דיסוציאציה של רקמה והשחז רקמות תאים
כפי שמתואר ב-איור 1A, לאחר פירוק מכני וסנטריפוגה במדרג צפיפות, דגימה שעובדה כהלכה צריכה להניב משקוב (pellet) צלול חזותית עם מינימום שאריות מיאלין לאחר סנטריפוגת Percoll. בניסויים מייצגים שבהם נעשה שימוש ברקמות מוח מנתיחות לאחר מוות של PWH, תנובת התאים הכוללת לפני ברירה אימונומגנטית נעה בדרך כלל בין 8.0 × 10⁴ ל-1.0 × 10⁶ תאים לגרם של רקמת מוח, נתון הנמוך משמעותית מתנובות של רקמות טחול (~5 × 10⁷ תאים/גרם) (טבלה 1), דבר המשקף הבדלים ביולוגיים מובנים בין רקמות אלו.
תנובתיות נמוכה יותר או חיוניות מופחתת מקושרות לעיתים קרובות למרווחי זמן ממושכים לאחר המוות (>24 h), תנאי אחסון תאים שאינם אופטימליים, או כוח מכני מוגבר במהלך ההומוגניזציה. במקרים אלה, שכבת המיאלין לאחר סנטריפוגת Percoll נראית עבה ומפוזרת יותר, והממשק המכיל תאי CNS מוגדר בצורה פחות ברורה. הסרה חלקית של שכבת המיאלין (שלב 4.4 בפרוטוקול) עלולה להוביל לזיהום בשאריות מיאלין, שעלולות להיות מזוהות בטעות כתאים מתים במהלך ספירה בשיטת trypan blue exclusion. זיהום זה עלול לפגוע גם בסימון נוגדנים בהמשך התהליך, ובכך לפגוע ביעילות ההפרדה המגנטית. אם קיים חשד למעבר שאריות מיאלין, מומלץ לבצע שלב נוסף של סנטריפוגת מדרג Percoll לפני הבחירה האימונו-מגנטית.
פракציית T של +CD3
ה-CD3⁺ שלב הברירה החיובית של תאי T משמש למטרה כפולה: העשרת פракציית תאי ה-T לצורך אנליזות מקבילות של תאי מערכת העצבים המרכזית (CNS), תוך כדי דילול לימפוציטים T חודרים מהפракציה המועשרת בתאים מיאלואידים, כדי למנוע זיהום פוטנציאלי של תאי T בתאים מיאלואידיים בודדים. בניסויים מייצגים, ה-CD3⁺ החלק מהווה כ-2%–8% מכלל התאים המבודדים (כ-1 × 10⁴ תאים/גרם רקמה) (טבלה 1), בדומה לדיווחים קודמים המצביעים על חדירה מוגבלת וברמות נמוכות של תאי T ברקמות של מערכת העצבים המרכזית (CNS) שזוהמו ב-HIV.
CD11b⁺ העשרה, אפיון ו... של BrMC ex vivo תרבית
בעקבות דילול CD3⁺, הפרקציה של CD3⁻ הוכפפה לבחירה של CD11b⁺ באמצעות מיקרו-חרוזיים מגנטיים. כפי שדווח בעבר(12), הליך זה אפשר לנו להעשיר BrMCs מסוג CD11b⁺ ל-95.2%, בהשוואה ל-28.4% בפרקציה לפני הבחירה. בדיקת RT-qPCR רגישה ביותר עבור סמן תאי T מסוג CD3E (המסוגלת לזהות תא T אחד בתוך מיליון BrMCs) לא הראתה תאי T ניתנים לזיהוי ב-BrMCs/מיקרוגליה המבודדים(12), דבר שאישר את הטוהר הגבוה שלהם ושלל כל זיהום של תאי T.
תאי BrMCs מזוקקים CD11b⁺ תורבדו לאחר מכן במדיום תאי מיקרוגליה למשך עד שבועיים, כדי לאפשר התאוששות של התאים והיצמדות להם לצורך התחלת צמיחת התאים. כפי שמוצג ב-איור 1B, תאי BrMCs אנושיים מבודדים יצרו שכבה אחת (monolayer) כבר ביום ה-5 לאחר הבידוד והפגינו מורפולוגיה דו-קוטבית. תאים אלו מוכנים כעת למדידות ex vivo, לאפיון ולבדיקות תפקודיות המשך. ניתוח טוהר מייצג מבוסס ציטומטריה זרימה של פракציית ה-CD11b⁺ שבודדה ממוח של NHP מוצג ב-איור 2A, ומראה כי 97.3% מהתאים ביטאו במשותף CD11b ו-TMEM119. טוהרן של תכונות BrMC אנושיות ואלו של NHP אחרים תואר בעבר12. בניתוחים אלו, פракציית ה-CD11b⁺ הועשרה מ-28.4% ל-95.5%, כאשר תאי TMEM119⁺ היוו עד 95.9% מהאוכלוסייה המבודדת מדגימות אנושיות. אנו מתייחסים לתאים אלו כמיקרוגליה, אף שחלק קטן מהם עשוי לייצג אוכלוסיות אחרות של תאי מיאלואי השוכנים במוח.
ניתן להחיל הליך דומה גם כדי לבודד תאי T מסוג CD3⁺ ותאי מיאלואיד מסוג CD11b⁺ (SMCs) מהטחול (Table 1). בדיקת הניקיון הדגימה כ-98.9% של תאי CD3+ ו-99.3% של תאי CD11b+ (Figure 2B,C). ניתן היה להחזיק אוכלוסיות חיים אלו של תאים בתרבית (Figure 2E,F), מה שאיפשר ביצוע ניתוחים השוואתיים בזוגות עם תאים מבודדים ממערכת העצבים המרכזית (CNS) (Figure 2D).
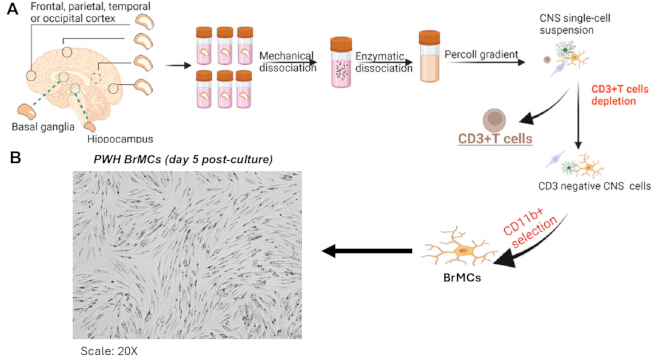
איור 1תהליך בידוד רצופי דו-שלבי לטיהור BrMCs. (A) סכימה של הליך בידוד תאי מערכת העצבים המרכזית (CNS) בשני שלבים לניקוי CD11b⁺ BrMCs. (B) המורפולוגיה של BrMCs (הגדלה פי 100) לאחר 5 ימים בתרבית מראה היצמדות מוצלחת של MG לכלי. קיצורים: BrMCs = תאי myeloid של המוח; CNS = מערכת העצבים המרכזית; MG = מיקרוגליה. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
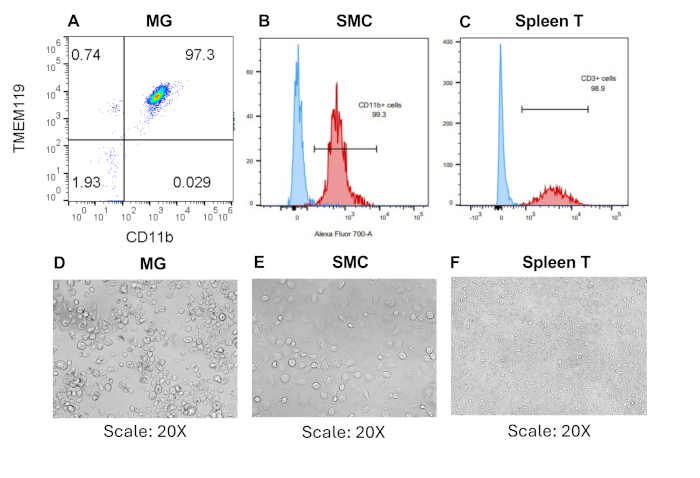
איור 2בידוד מוצלח של תאי T ותאי מיאלואיד מהטחול. (א-גניתוח של CD3 באמצעות ציטומטריית זרימה⁺ ו-CD11b⁺ שברים באמצעות הנוגדנים המצוינים. (ד-ף) תמונות נבחרות (למטה) מראות מיקרוגליה, CD3⁺ תאי T ותאי מיאלואיד מהטחול 7 ימים לאחר תרבית בעקבות בידוד מהמוח ומהטחול (קנה מידה: 20x). קיצורים: SMCs = תאי מיאלואיד מהטחול; MG = מיקרוגליה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
| אזור | משקל רקמה (ג') | טרום-בידוד | CD3+ תאי T | CD11b+ תאי שריר חלק של עורקי המוח/תאי שריר חלק | |||
| אנשים החיים עם HIV (PWH) | תאים חיים | תאים/גרם רקמה | תאים חיים | תאים/גרם רקמה | תאים חיים | תאים/גרם רקמה | |
| FCP | 18.25 | 8.82E+06 | 4.83E+05 | 7.30E+05 | 1.33E+04 | 2.82E+06 | 1.55E+05 |
| PCT | 4.1 | 3.53E+05 | 8.61E+04 | 1.20E+05 | 2.93E+04 | ||
| TCX | 16 | 4.15E+06 | 2.59E+05 | 2.79E+06 | 1.74E+05 | ||
| OCC | 4.24 | 1.75E+06 | 4.13E+05 | 4.50E+05 | 1.06E+05 | ||
| CRB | 11.4 | 4.15E+06 | 3.64E+05 | 2.64E+06 | 2.32E+05 | ||
| ה | 1 | 1.23E+06 | 1.23E+06 | 6.00E+04 | 6.00E+04 | ||
| SPL | 5.25 | 2.82E+08 | 5.37E+07 | 2.98E+07 | 5.68E+06 | 9.60E+06 | 1.83E+06 |
טבלה 1: התנובה של כל סוג תא לאחר בידוד דו-שלבי של תאי CNS.
דיון
כדי לאסוף נתונים הניתנים לשחזור באמצעות פרוטוקול זה, חשוב לעקוב אחר כל שלב בקפידה. השמטה או חישוש בכל חלק מהתהליך עלולים להפחית את תנובת התאים, את חיוניותם ואת טוהרם. הגורם הקריטי ביותר לפני הניתוח הוא המהירות שבה מעבדים את הרקמות לאחר המוות42. יש לטפל ברקמת מוח אנושית מהר ככל האפשר, באופן אידיאלי בתוך 6–12 h. המתנה ממושכת יותר גורמת לפירוק של אנטיגנים על פני השטח של מיקרוגליה, כגון TMEM119 ו-P2RY12, ומפחיתה את חיוניות התאים20. כדי למנוע זאת, קריטי להבטיח שהרקמות יועברו במהירות ויאוחסנו באופן מיידי בטמפרטורה של 4 °C ב-HBSS עם DNase I.
יש לכוון את הדיסוציאציה המכנית בזהירות43. הומוגניזציה יתר שוברת תאים ומשחררת DNA, דבר הגורם להיווצרות גושים ומפחית הן את התוצאה והן את יעילות העמודה44. אם הרקמות אינן עוברות הומוגניזציה מספקת, תאים חיים יישארו לכודים בתוך שברי רקמה. הוספת DNase I למדיום הדיסוציאציה מסייעת במניעת היווצרות גושים45. שימוש בשלושה עד ארבעה מחזורי גריסה עם שטיפות ביניהם עובד בדרך כלל היטב. עבור סנטריפוגציית מדרג צפיפות Percoll, חשוב להקפיד על הגדרות הסנטריפוגה בדיוק רב ולא להשתמש בבלם, שכן פעולה זו תערבב את השכבות ותהרוס את הפרדת התאים45. בעת הוספת HBSS לתליה של ה-Percoll, יש למצוק את ה-HBSS לאט לאורך דופן המבחנה כדי לשמור על הפרדה בין השכבות. אם החוקרים אינם מנוסים בכך, מומלץ להתאמן עם תמיסות צבעוניות לפני השימוש ברקמה יקרת ערך. במהלך הפרדה בעמודה מגנטית של CD11b+, יש לשמור על התאים ועל כל הבאפראים בטמפרטורה של 4–8 °C. אם הטמפרטורה תעלה מעל ערך זה במהלך דגירת המיקרו-בידס, הדבר עלול לגרום לסימון לא ספציפי, ל-antibody capping ולבליעת בידס, שכל אלה יפחיתו משמעותית את הטוהר ואת יעילות הבחירה33.
ניתן להתאים פרוטוקול זה לסוגי רקמות שונות או להגדרות מעבדה שונות. אם הרקמה מכילה תאי דם אדומים רבים, כגון במקרים שבהם פרפוזיה לבבית אינה מלאה, ניתן להוסיף שלב ליזיס באמצעות ACK לפני סנטריפיגציה במעבר של Percoll כדי להסירם ולשפר את ההפרדה46. אין לבצע אינקובציה עם ACK לפרקי זמן ממושכים, שכן הדבר עלול לפגוע בחיוניות הלבנוציטים47. אם התנובה נשארת נמוכה, יש לבדוק את השאריות שנותרו על המסננת תחת מיקרוסקופ דיסקציה. אם קיימת כמות גדולה של רקמה חיונית, ניתן להגדיל את מספר מחזורי הגריסה, או לחתוך את חתיכות הרקמה לגדלים קטנים מ-0.5 g למסננת. בעת השחזור ממעבר ה-Percoll, מומלץ להשאיר כמות קטנה של Percoll מעל המשקע במקום להסתכן באובדן של השכבה הבין-פזית (interphase). אם העמודה נסתמת במהלך הפרדת MACS, הדבר מעיד בדרך כלל על כך שהועמסו תאים רבים מדי או ששאריות נותרו בתמיחה.
בעוד שפרוטוקול זה תוכנן עבור רקמות מוח אנושיות נגועות ב-HIV, ישנן מספר מגבלות חשובות שיש לקחת בחשבון בעת פירוש התוצאות. דיסוציאציה מכנית תמיד גורמת לעקה תאית, שעלולה לשנות באופן זמני את ביטוי הגנים של המיקרוגליה ולהפעיל מסלולים דלקתיים33,48. מגבלה נוספת היא השימוש ב-CD11b כסמן הבחירה העיקרי. CD11b נמצא בתאי מיאלואיד רבים של מערכת העצבים המרכזית, ולא רק במיקרוגליה, והוא קיים גם במונוציטים ובמקרופאגים חודרים, הנפוצים יותר ברקמה נגועה ב-HIV עקב נוירו-דלקת49. כדי להבדיל בין מיקרוגליה תושבת לתאים חודרים, נדרש ניתוח נוסף באמצעות סמנים ספציפיים למיקרוגליה כגון TMEM119, P2RY12 ו-SALL120,50. מגבלה שלישית היא זמינות הרקמות וההבדלים בין התורמים. לא ניתן להחליף דגימות מוח אנושיות לאחר המוות, מה שהופך את אופטימיזציית הפרוטוקול באמצעות רפליקות טכניות מאותו תורם לאתגר קיצוני. קיימות גם וריאציות בין רקמות בבחינת התפוקה, החיות והפעלת המיקרוגליה, במיוחד בקרב PWH, שבהם המצב הנוירו-קוגניטיבי, היסטוריית ה-ART ובעיות בריאותיות אחרות משתנות במידה רבה. יש לתעד ולבקר הבדלים אלו בקפידה בניסויים.
בהשוואה לשיטות אחרות, בידוד מבוסס FACS באמצעות נוגדנים נגד CD11b, CD45, TMEM119 או P2RY12 משיג טהרה גבוהה, אך הוא דורש ציוד יקר, גוזל זמן ומגביר את העקה התאית33,51. כמו כן, הוא גורם להשבה נמוכה יותר של תאים בהשוואה לשיטות המבוססות על חרוזי מגנט52. Immunopanning הוא ספציפי מאוד אך גוזל זמן רב, דורש הכנה מיוחדת של תשתית, ואינו מתאים להרחבה (scaling) לעיבוד רקמות ממספר אזורים53. ערכות דיסוציאציה אנזיםטיות מסחריות יכולות לשפר את תפוקת התאים הבודדים ולהפחית עקה מכנית, אך הן יקרות יותר ועשויות לשנות סמני שטח של התאים באמצעות פעילות פרוטאזית, ובכך להפחית את יעילות הסימון בשלבים הבאים של הפרדה אימונומגנטית או ציטומטריית זרימה54,55. לכן, פרוטוקול זה כולל עיכול אנזימטי עדין במהלך שלב הדיסוציאציה המרכזי כדי לשמר אנטיגנים של השטח, דבר החשוב במיוחד עבור סמנים רגישים כגון CD11b, CD68 ו-TMEM119. גישת הדילול וההעשרה האימונומגנטית בשלבים המיושמת כאן, הכוללת דילול של תאי T מסוג CD3+ ולאחריו בחירה חיובית של תאים מסוג CD11b+, מציעה יתרון משמעותי בזרימת העבודה על פני פרוטוקולים של שלב אחד. היא מאפשרת השבה של תאי T למחקרים אימונולוגיים מקביליים תוך מקסום טהרת הפракציה המילואידית. השבה כפולה זו מועילה במיוחד במחקר על מאגרי HIV, שבו הן תאי T והן תאים מילואידיים במערכת העצבים המרכזית (CNS) חשובים למחקר.
ה-CD11b המבודד+ ניתן להשתמש בתאים עבור מגוון יישומים מחקריים. לצורך חקר מאגרי וירוסים, פракציה זו מתאימה למדידת אנטיגן p24 של HIV, למדידת מספר העותקים של DNA/RNA של HIV באמצעות droplet digital PCR, ו- ex vivo בדיקות צמיחה נגיפית (viral outgrowth assays)56,57כל אלה דורשים תאים מיאלואידיים חיים ומועשרים, והם חשובים להבנת המאגר במערכת העצבים המרכזית (CNS) המתמיד למרות טיפול ART.58עבור מחקרים טרנסקריפטומיים, תאים שהוכנו באמצעות פרוטוקול זה מתאימים הן לריצוף RNA בשיטת bulk והן לריצוף RNA ברמה של תא בודד (single-cell).59,60דבר זה מאפשר לחוקרים לבחון את הפעלת המיקרוגליה, חתימות של מיקרוגליה הקשורות למחלה ותגובות של מיקרוגליה לזיהום ב-HIV ברמת התא הבודד.61בעזרת שינויים קלים, כגון שימוש בערכות סלקציה שונות והתאמה של נפחי הגרדיאנט, ניתן להחיל סבב עבודה זה על מחלות נוירולוגיות אחרות, כולל אלצהיימר, טרשת נפוצה, Long COVID19 ופגיעות ראש טראומטיות, עבורן נדרש אף הוא ניתוח של מיקרוגליה מרקמות לאחר מוות.49,62.
לסיכום, פרוטוקול זה מספק שיטה מהימנה, ניתנת להרחבה, גמישה וניתנת לשחזור לבידוד תאי מילואי/מיקרוגליה מרקמות מוח של בני אדם ובעלי חיים. מכיוון שהוא תואם לפלטפורמות ניתוח רבות וביצועיות, ומאפשר השבה של סוגים מרובים של תאי מערכת החיסון מדגימת רקמה אחת, הוא מהווה כלי בעל ערך לחוקרים בתחומי הנוירו-אימונולוגיה, הווירולוגיה והנוירופתולוגיה.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
We thank Dr. Sara Gianella from the “Last Gift” cohort at UC San Diego for collecting human tissues. We also thank Dr. Ann Chahroudi at the Emory National Primate Research Center, Dr. Afam Okoye at Oregon Health & Science University, and Dr. Satya Dandekar at the University of California, Davis, for providing rhesus macaque tissues. This work was supported by R21MH128034, R01MH136852, R21AI167709, R01MH139446, and R01AI186609. The funders had no role in study design, data collection and analysis, decision to publish, or preparation of the manuscript.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מזרקים 10 mL | VWR | Cat# 76837-040 | |
| פיפטות סרולוגיות 25 mL | VWR | Cat# 76201-710 | |
| ACK lysis buffer | Thermo Fisher Scientific | Cat# A1049201 | |
| Antibiotic-Antimycotic (100x) | Thermo Fisher Scientific | Cat# 15240112 | |
| autoMACS Rinsing Solution | Miltenyi Biotec | Cat# 130-091-222 | |
| מCבט בטיחות ביולוגית (BSL-2) | |||
| CD11b MicroBeads, אנושי ועכבר – ליאופיליזד | Miltenyi Biotec | Cat# 130-097-142 | |
| CD11b MicroBeads, פרימט שאינו אנושי | Miltenyi Biotec | Cat# 130-091-100 | |
| CD3 MicroBead Kit, פרימט שאינו אנושי | Miltenyi Biotec | Cat# 130-092-012 | |
| שקופיות לספירת תאים | Thermo Fisher Countess | Cat# C10312 | חלופה VWR, Cat# 10228-0050 |
| חומר הלבנה קוטל חיידקים Clorox | Essendant | Cat# 50371500 | |
| Corning Untreated Culture Dishes | Thermo Fisher Scientific | Cat# 08-772-32 | |
| Cynomolgus Monkey M-CSF | Kingfisher Biotech | Cat# RP1612Y-100 | |
| מזרקים חד-פעמיים עם קצוות Luer-Lok | BD | Cat# 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | Cat# 11320082 | |
| DNase I, רקומביננטי, ללא RNase | Roche | Cat# 4716728001 | |
| EasySep Buffer | STEMCELL Technologies | Cat# 20144 | |
| EasySep FITC Positive Selection Kit II | STEMCELL Technologies | Cat# 17682 | |
| EasySep Release Human CD3 Positive Selection Kit | STEMCELL Technologies | Cat# 17751 | |
| מסנני תאים Falcon, 70 µm ו-100 µm | Corning | Cat# 21008-950 | |
| סרום בקר עוברי (FBS) | VWR | Cat#97068-091 | |
| פינצטה מעוקלת דקה | VWR | Cat# 82027-410 | |
| Gentamicin | Thermo Fisher Scientific | Cat# 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | Cat# 11875-119 | |
| HBSS, 1x ללא סידן, מגנזיום ופנול אדום | Thermo Fisher Scientific | Cat# 14175103 | |
| HBSS, 10x עם סידן, מגנזיום ופנול אדום | Thermo Fisher Scientific | Cat# 14060040 | |
| המ ציטומטר או סופר תאים אוטומטי | |||
| Human M-CSF | PeproTech | Cat# 300-25 | חלופה Cat# 78057 |
| תמיסת שטיפה/דילול איזוטונית להפרדה מגנטית | Miltenyi Biotec | 130-091-222 | |
| L-Glutamine (200 mM) | Thermo Fisher Scientific | Cat# 25030-061 | |
| MACS BSA Stock Solution(20x) | Miltenyi Biotec | Cat# 130-091-376 | |
| מערכת הפרדה מגנטית | EasySep or MACS | ||
| עמודי MS | Miltenyi Biotec | Cat# 130-042-201 | |
| Penicillin-Streptomycin | hermo Fisher Scientific | Cat# 15140122 | |
| Percoll | Cytiva/GE Healthcare, | Cat# GE17-0891-01 | |
| חלוקי מגן | Kappler ProVent | Cat# 17-988-497B | |
| צנטריפוגה מקוררת | |||
| Sodium Pyruvate (100 mM) | Thermo Fisher Scientific | Cat# 11360070 | |
| פינצטת דגימות | VWR | Cat# 82027-440 | חלופה Cat# 82027-438 |
| סכינונים סטריליים חד-פעמיים | Cardinal Health | Cat# 11213-237 | חלופת VWR Cat# 89140-800 |
| TrypLE Express Enzyme (1x), פנול אדום | ThermoFisher | Cat# 1250510 |
מקורות
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.