פרוטוקול זה מדגים שיקום בתיווך דטרגנט של חלבון ממברנה, ציטוכרום bo3 אוביקווינול אוקסידאז, לוזיקולות חד-למלריות גדולות העשויות מ-PDMS-g-PEO והמרה שלהן לוזיקולות ענקיות באמצעות היתוך ואלקטרופורמציה (היתוך-אלקטרופורמציה). התאים הפונקציונליים מבוססי פולימר המתקבלים מתאימים למחקרים ביוכימיים וביופיזיקליים מתקדמים.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
הכנת וזיקולות גדולות וענקיות חד-למלריות, פולימר פונקציונלי עם חלבון ממברנלי, ופולימר/שומן
במאמר זה
סיכום
תקציר
וזיקולות המורכבות מקופולימרים אמפיפיליים, לבדם או מעורבבים עם פוספוליפידים, מציעות יציבות מכנית וכימית גבוהה יותר בהשוואה לוזיקולות שומנים קונבנציונליות. זה הופך אותם לשלדה אטרקטיבית, שניתן לפתח ולהרחיב אותה עוד כדי לאפשר יישומים ספציפיים, כגון אספקת תרופות, חישה ביולוגית אבחנתית, בניית תאים מלאכותיים ומיקרו-כורים בהשראה ביולוגית. במיוחד, פונקציונליזציה באמצעות שילוב חלבוני ממברנה היא חיונית לרבים מהיישומים הללו. כאן, אנו מציגים פרוטוקול להכנת וזיקולות חד-למלריות גדולות (LUVs) עם תפקוד חלבון ממברנה מקופולימר השתל PDMS-g-PEO באמצעות שיקום מתווך דטרגנטי. יתרה מזאת, אנו מתארים כיצד ניתן להמיר וזיקולות גדולות אלו ל-VUVs ענקיות (GUVs) באמצעות גישת היתוך-אלקטרופורמציה (fusion-electroformation). הפרוטוקול כולל תיוג פלואורסצנציה של חלבוני ממברנה, הכנת LUVs פולימריים והיברידיים, שיקום חלבוני ממברנה, ניתוח התפלגות גודל באמצעות פיזור אור דינמי (DLS), הערכת פעילות חלבונים באמצעות מדידות צריכת חמצן, הכנת GUVs פונקציונליים חלבונים, וניתוח החדרת חלבונים ופעילות משאבת פרוטונים ב-GUVs באמצעות מיקרוסקופיה קונפוקלית. תוצאות מייצגות מראות היווצרות פרוטאו-LUVs מונודיספיז עם מדד פולידיספיסריות (PDI) מתחת ל-0.2, ויצירת מוצלחת של פרוטאו-GUVs בקוטר של 5–35 מיקרון. פעילות החלבון מאושרת על ידי מדידות צריכת חמצן הן ב-LUVs פולימריים (18.2 nmol/min/mL) והן ב-LUVs היברידיים (26.9 nmol/min/mL). הכנסת חלבונים ל-GUVs נמדדת באמצעות עוצמת פלואורסצנציה, ומניבה 20.6 ± 3.7 a.u. עבור GUVs פולימריים ו-26.2 ±-5.0 a.u. עבור GUVs היברידיים. פעילות שאיבת פרוטונים ב-GUVs, המפוקחת באמצעות צבע רגיש ל-pH בכיסוי, תואמת את תפקוד החלבונים, כאשר שאיבת פרוטונים פנימה היא הדומיננטית. הרכות המכאנית של הקופולימר ועובי השכבה הדו-ליפידית שלו (~5.3 ננומטר) תומכים בהכנסת חלבונים יעילה ובשימור תפקוד.
מבוא
קופולימרים של בלוק אמפיפיליים יכולים להתאסף בעצמם בתמיסה מימית לממברנות, אשר מתעקלות ונסגרות על עצמן באופן ספונטני ליצירת תאים כדוריים מוקפים בממברנה הנקראים פולימרזומים (וזיקולות פולימרים). בהשוואה לממברנות שומן, תאים מבוססי פולימר מציעים גמישות כימית מוגברת ויציבות כימית1 ויציבות מכניתמשופרת 2, מה שהופך אותם לאטרקטיביים במיוחד ליישומים כמו העברת תרופות, ננו-כורים ומיקרו-ריאקטורים, ובניית תאים מלאכותיים עמידים. גם הקבוצה שלנו וגם אחרות הפכו ממברנות פולימריות לפונקציונליות על ידי הכנסת חלבוני ממברנה ליצירת אברונים ותאים מלאכותיים 1,3,4,5,6,7,8,9,10,11,12,13,14,15 . פולימרים המכילים גרעין הידרופובי פולי(דימתילסילוקסן) (PDMS) מתאימים במיוחד לשילוב חלבון ממברנה בזכות גמישות השרשרת הגבוהה והאפשרות לכוון את עובי ההידרופובית של הממברנה כך שיתאים טוב יותר לתחום הטרנסממברנלי של החלבון5. בעוד שהמעבדה שלנו התמקדה בעיקר בקופולימר פולי (דימתילסילוקסן)-גרפט-פולי (תחמוצת אתילן) (PDMS-g-PEO), היוצר ממברנות דינמיות מאוד 4,16,17 הרכות יותר משכבות שומן קונבנציונליות ומציגות עובי של כ-5.3 ננומטר1, קבוצות אחרות השתמשו בהצלחה בקופולימרים טריבלוקיים מבוססי PDMS כגון PMOXA-b-PDMS-b-PMOXA5,6,7,8,9,10,11 ו-PEtOz-b-PDMS-b-PEtOz12 לשיקום חלבון ממברנה. אפילו קופולימרים דיבלוקיים קשיחים יחסית כמו PBD-b-PEO, במיוחד במערכות היברידיות המעורבבות עם ליפידים, שימשו לשילוב חלבון מוצלח13. דוגמאות אלו מדגישות את הרב-שימושיות של ממברנות מבוססות פולימר כפלטפורמות שיקום, שיכולות גם לספק יציבות כימית משופרתוהארכת חיים תפקודית לחלבוני ממברנה משולבים. למרות שממברנות היברידיות של פולימר/ליפידים עשויות שלא תמיד להתאים ליציבות הכימית של מערכות פולימר טהורות1, הן מציעות פשרה אטרקטיבית בשילוב עמידות מכנית של פולימרים עם הרלוונטיות הביולוגית של הליפידים. כתוצאה מכך, נוצרת סביבה ממברנית שמדמה יותר ממברנות ביולוגיות טבעיות תוך שמירה על יתרונות מרכזיים של חומרים סינתטיים. ארכיטקטורות היברידיות כאלה יכולות להציע יתרונות נוספים, כולל הפחתת חדירות פרוטונים הנובעת מסידור ננומטרי1 והיווצרות דומיין בתוך הממברנה15.
קיימות מספר טכניקות לשיקום חלבוני ממברנה לוסיקולות ננו-גדלות (LUVs), כולל שיקום מתווך ממיס אורגני (למשל, אידוי הפוך, הידרציה מחדש של שכבות חלבוני שמן), גישות מכניות (למשל, סוניקציה, פרנץ' פרס, הקפאה-הפשרה), ושיקום מתווך על ידי חומר ניקוי (באמצעות הסרת חומרי ניקוי, דילול או שילוב ישיר)18, ואסטרטגיות עדכניות יותר כמו העברה ישירה מננודיסקים קופולימריים של חומצת סטירן-מאלית19. בעוד שפורינים שולבו בהצלחה ב-LUVs פולימריים באמצעות החדרה ישירה, לדוגמה, על ידי הוספת החלבון לשכבת הפולימר במהלך הידרציה8. גישה זו בדרך כלל גורמת ליעילות החדרה נמוכה לחלבוני ממברנה גדולים או מורכבים יותר, ולעיתים מובילה לאוריינטציה אקראית של חלבונים. כתוצאה מכך, שיטה מחדש בתיווך חומרי ניקוי, הכוללת תוספת מבוקרת של חומר ניקוי ואחריה הסרה, נותרה השיטה הנפוצה ביותר. זו גם האסטרטגיה המועדפת לשילוב חלבוני ממברנה גדולים יותר בתוך LUVs מבוססי פולימר, במיוחד עבור חלבונים אסימטריים שבהם כיוון מבוקר הוא קריטי לתפקוד. בגישה זו, ממברנות הוזיקולות רוויות תחילה בחומר הניקוי המועדף (ריכוז הדטרגנט הרווי מסומן כ-Rsat), ממוססות חלקית (קיום משותף של וזיקולות ומיצלות), או ממוססות לחלוטין, כלומר מפורקות למיצלות (ריכוז הדטרגנט מסומן כ-Rsol). טיפול ראשוני בממברנה זה מלווה בהוספת חלבונים, דגירהוהסרת חומר ניקוי. האחרונה יכולה להתבצע באמצעות דיאליזה, כרומטוגרפיה של החרגת גודל, או ספיחה על חרוזי פוליסטירן הידרופוביים (למשל, חרוזי ביו). בחירת חומר הכביסה, ריכוזו ושיטת ההסרה מותאמים לכל סוג ממברנה וחלבון כדי למקסם את יעילות השילוב ולשלוט בכיוון החלבון20.
בעוד ש-LUVs מתאימים מאוד למדידות פעילות נפוצה, מחקרי שלף יחיד וניתוחים מבוססי מיקרוסקופיה אופטית דורשים שיחזור חלבוני ממברנה לשליפיות חד-למלריות ענקיות (GUVs). חמש גישות עיקריות משמשות לשילוב חלבונים ב-GUVs: קו-פורמציה בנוכחות חלבון וממס אורגני21, קו-פורמציה בנוכחות דטרגנט22, החדרה ל-GUVs מוכנים מראש באמצעות דילול דטרגנט23, החדרה באמצעות מיזוג ממברנה עם פרוטאו-LUVs16,24, והיתוך-אלקטרופורמציה25. למרות שגישות אלו יושמו בהצלחה על GUVs עם שמן, העברתן ל-GUVs היברידיים מפולימר או פולימר/ליפידים היא לעיתים קרובות מאתגרת. במיוחד, שיטות קו-פורמציה ודילול חומר ניקוי לעיתים קרובות גורמות ליעילות החדרה נמוכה בממברנות פולימריות או שאינן תואמות עם תרכובות פולימרים מסוימות15. אסטרטגיות מבוססות היתוך 4,16,24,26,27 התלויות בסוכנים פוזוגניים נוספים עשויות גם הן להיות בעייתיות, שכן ליפידים/פולימרים קטיוניים סינתטיים או פפטידים פוזוגניים עלולים לפגוע ביציבות חלבוני הממברנה, לשנות את תכונות הממברנה או להפחית את יעילות השילוב של החלבון המטרה. פיוז'ן-אלקטרופורמציה מתגברת על רבות מהמגבלות הללו והוכחה כשיטה חזקה ויעילה לשילוב חלבוני ממברנה ב-GUVs היברידיים של פולימר ופולימר/ליפידים 1,5,15. גישה זו מאפשרת שילוב מבוקר של חלבונים תוך שמירה על שלמות הממברנה ותפקוד החלבון, מה שהופך אותה למתאימה במיוחד ליצירת GUVs פולימריים פונקציונליים על ידי חלבון.
שיקום משאבות פרוטון לוזיקולות מבוססות פולימר הוא חיוני לבניית תאים מלאכותיים עמידים, שכן הוא מאפשר יצירת גרדיאנטים פרוטונים טרנסממברנליים — המטבע האנרגטי הבסיסי של מערכות חיים. על ידי שחזור המרת אנרגיה כימאוסמוטית בסביבת ממברנה מינימלית מבוקרת28, וזיקולות אלו יכולות להניע סינתזת ATP, הובלה פעילה ותגובות מטבוליות, וליצור את הבסיס האנרגטי הנדרש לפונקציונליות אוטונומית ודמוית חיים. משאבת פרוטון מייצגת המשמשת במערכות כאלה היא ציטוכרום bo3 אוקסידאז מ-E. coli, אנזים נשימתי סופי שמקשר הפחתת חמצן להעברת פרוטונים דרך הממברנה. מכיוון שהעברת אלקטרונים ושאיבת פרוטונים קשורות זו לזו באופן הדוק, ניתן למעקב כמותי אחר פעילותן בוסיקולות סינתטיות באמצעות צריכת חמצן 1,20 או על ידי מעקב אחר יצירת גרדיאנטפרוטונים 1.
בפרוטוקול זה, אנו מציגים תהליך מפורט להכנת LUVs מבוססי PDMS-g-PEO, כולל ממברנות היברידיות של פולימר טהור ופולימר/ליפידים, פונקציונליזציה שלהן עם חלבוני ממברנה, הגדלה ל-GUVs, ומדידות פעילות של ציטוכרום bo3 אוקסידאז במשאבת פרוטונים מחודשת באמצעות בדיקות צריכת חמצן בכמות גדולה ומדידות שאיבת פרוטון חד-וזיקולית.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
הערה: כל פסולת כימית מסוכנת שנוצרת במהלך פרוטוקול זה חייבת להיפטר בהתאם לתקנות מוסדיות ומקומיות.
1. הכנה ל-Bio-Beads SM-2
הערה: Bio-Beads SM-2 נשטפים מראש עם מתנול להסרת חומרים משמרים ומזהמים אורגניים לפני ספיגת חומרי הניקוי.
- הנח נייר סינון במשפך זכוכית הממוקם מעל בקבוק זכוכית נקי או בקבוק.
- הוסף לפחות 600 מ"ג Bio-Beads SM-2 למשפך (מספיק ל-3 חזרות של בנייה מחדש גם עבור LUVs היברידיים וגם פולימריים).
הערה: נדרש מינימום של 90 מ"ג Bio-Beads SM-2 בכל תהליך בנייה מחדש, כפי שמפורט בשלב 4.4.1. ניתן להכין סכום גדול יותר אם מתוכננים שיפוצים נוספים. - שטפו את החרוזים שלוש פעמים עם מתנול טהור, תוך שימוש בנפח מספיק כדי לטבול אותם במלואם בכל פעם.
אזהרה: בצע את כל שלבי הטיפול במתנול בתוך מכסה אדים כימיקלים. - שטפו מיד את החרוזים שלוש פעמים במי מילי-קיו כדי להסיר את שאריות המתנול.
הערה: אל תתנו לחרוזים להתייבש במהלך תהליך הכביסה. בעת הסרת תמיסות הכביסה, ודאו שהחרוזים נשארים לחים ולא מאפשרים להם להתייבש לחלוטין. - העבר את החרוזים השטופים למיכל אחסון מתאים (למשל, צינור צנטריפוגה פוליפרופילן סטרילי בנפח 50 מ"ל או בקבוק זכוכית עם מכסה אטום היטב), הוסף מי מילי-Q עד שהחרוזים טבולים לחלוטין, ואחסן בטמפרטורה של 4 מעלות צלזיוס עד 3 חודשים.
2. תיוג פלואורסצנטי של חלבוני ממברנה
- דילול חלבון
- המיס ציטוכרום bo 3 אוקסידאז ל-2.2 mg/mL בבופר HEPES של 20 מ"מ המכיל 0.05% n-דודציל β-D-מלטוזיד (DDM) (עם v), pH 8.3. pH זה מבטיח חלק מספק של אמינים ראשוניים לא פרוטוניים (ריאקטיביים) לסימון יעיל.
הערה: לסימון מיטבי עם צבעי ATTO N-הידרוקסיסוקינימידיל (NHS), שמרו על pH בופר בין 8.3 ל-8.5. לצבעים אחרים, עקבו אחרי הוראות היצרן לגבי קונוגציית חלבונים, כולל תנאי הסימון המומלצים.
- המיס ציטוכרום bo 3 אוקסידאז ל-2.2 mg/mL בבופר HEPES של 20 מ"מ המכיל 0.05% n-דודציל β-D-מלטוזיד (DDM) (עם v), pH 8.3. pH זה מבטיח חלק מספק של אמינים ראשוניים לא פרוטוניים (ריאקטיביים) לסימון יעיל.
- הוספת צבע
- הוסיפו עודף מולר של אסטר תגובתי לאמין ATTO 643 N-הידרוקסיסוקינימידיל (NHS), מומס ב-2 מ"ג/מ"ל ב-DMSO אנהידר, לתמיסת החלבון.
הערה: לגבי צבעים אחרים, יש לעקוב אחרי הוראות היצרן לגבי קונוגציה של חלבון, כולל עודף מולר מומלרי מצבע לחלבון. - ערבבו בעדינות על ידי נגיעה בצינור המיקרוצנטריפוגה שלוש פעמים כדי להבטיח פיזור הומוגני של הצבע.
- הוסיפו עודף מולר של אסטר תגובתי לאמין ATTO 643 N-הידרוקסיסוקינימידיל (NHS), מומס ב-2 מ"ג/מ"ל ב-DMSO אנהידר, לתמיסת החלבון.
- דגירה
- דגרו את תערובת התגובה בטמפרטורת החדר (20–25 מעלות צלזיוס) במשך 1.5 שעות תחת ערבוב עדין (250 סל"ד) בתרמומיקסר ובחושך כדי למנוע הלבנת פוטו.
- הסרת צבע לא כרוך
- איזון עמודת Superdex 200 10/300 GL (CV: 23.562 mL) עם לפחות 2 נפחי עמודה (כ-48 מ"ל) של בופר שחרור חלבוני ממברנה (20 mM HEPES, pH 7.5, 200 mM KCl, 0.05% DDM (w/v)) בקצב זרימה של 0.3 mL/min באמצעות מערכת טיהור ÄKTA.
הערה: להסרת צבע פלואורסצנטי עודף, עמודי סינון ג'ל קצרים יותר (אורך מיטה של 10–20 ס"מ) בדרך כלל מספיקים, במיוחד לצבעים פחות הידרופיליים. יצרן הצבעים ממליץ להסיר מלח באמצעות מטריצת Sephadex G-25. בעמוד Superdex 200 10/300 GL שימש במחקר זה בשל זמינות המכשיר. - טעין עד 500 מיקרוליטר מהחלבון המסומן באמצעות לולאת קפילריות של 1 מ"ל ועם אותו בופר ב-0.3 מ"ל לדקה.
- יש לעקוב אחרי הספיגה על ידי מדידת ספיגה ב-280 ננומטר לחלבון ו-643 ננומטר עבור צבע ATTO 643.
- אסוף שברים של 0.5 מ"ל על פני נפחי עמודה של 1.5. זהה שברים המכילים גם חלבון וגם צבע. השתמש ישירות אם מרוכז מספיק, או ריכז באמצעות יחידות סינון צנטריפוגליות אמיקון. לריכוז באמצעות מסנני אמיקון, השתמשו במסנן צנטריפוגלי עם חיתוך משקל מולקולרי של 30 קילודאלטון ובצנטריפוגה ב-14,000 × גרם למשך 30 דקות בטמפרטורה של 4 מעלות צלזיוס.
- איזון עמודת Superdex 200 10/300 GL (CV: 23.562 mL) עם לפחות 2 נפחי עמודה (כ-48 מ"ל) של בופר שחרור חלבוני ממברנה (20 mM HEPES, pH 7.5, 200 mM KCl, 0.05% DDM (w/v)) בקצב זרימה של 0.3 mL/min באמצעות מערכת טיהור ÄKTA.
- קביעת ריכוז החלבון ומידת הסימון (DOL)
- מדוד ספקטרום הספיגה של הקונגוגט המטוהר.
- חשב את ריכוז החלבון ואת מספר מולקולות הצבע הממוצע לכל אנזים באמצעות:
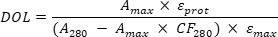
כאשר A מקסימום מייצג את הספיגה של הקונגוגט במקסימום הספיגה של הצבע (λabs; ATTO 643, λ = 643 ננומטר), A280 הוא הספיגה ב-280 ננומטר (מקסימום הספיגה של חלבונים), εפרוט הוא מקדם ההכחדה המולרית של ציטוכרום bo3 אוקסידאז (184,720 M⁻1ס"מ⁻1), εצבע הוא מקדם הכחדת המולר של הצבע (150,000 M⁻1ס"מ⁻1), ו-CF280 הוא גורם תיקון לספיגה ATTO 643 ב-280 ננומטר (0.04).
3. הכנת וזיקולות חד-למלריות גדולות (LUVs)
- הכנת סרט פולימר דק או פולימר/ליפידים
- השתמש בפיפטות עם הזזה חיובית עם קצוות עמידים לממס או במזרקי זכוכית אטומים לגז כדי להעביר תמיסות פולימר, ליפידים וצבע פלואורסצנטי המומסות בכלורופורם:מתנול (2:1, v/v) לבקבוקון זכוכית נקי לפי ההרכבים המפורטים בטבלה 1.
אזהרה: יש לבצע את כל הטיפול בממס תחת מכסה אדים תוך כדי לבישת כפפות מגן ומשקפי מגן. - ערבבו את התמיסה היטב על ידי מערבולת עדינה תוך החזקת הבקבוקון זקוף כדי להבטיח הומוגניות.
זהירות: כוון את מהירות המערבולת בזהירות כדי למנוע מהנוזל להתיז או להתיז החוצה מהבקבוקון על ידיך. - אידוי את הממסים האורגניים תחת זרם עדין של חנקן במכסה האדים למשך כשעה, עד שנוצרת שכבה דקה ואחידה על דופן המבחנה (איור 1).
הערה: כוון את זרימת החנקן כך שהנוזל ינוע בעדינות מבלי להתיז; זרימה גבוהה מדי עלולה לגרום להיווצרות שכבה לא אחידה. לאחר 5–10 דקות, ניתן להגביר מעט את הזרימה כדי להבטיח ייבוש מלא והתפשטות אחידה של תערובת הווסיקולות לאורך תחתית הבקבוקון.
- השתמש בפיפטות עם הזזה חיובית עם קצוות עמידים לממס או במזרקי זכוכית אטומים לגז כדי להעביר תמיסות פולימר, ליפידים וצבע פלואורסצנטי המומסות בכלורופורם:מתנול (2:1, v/v) לבקבוקון זכוכית נקי לפי ההרכבים המפורטים בטבלה 1.
- הידרציה בסרט
- החזירו את הסרט היבש עם 1 מ"ל בופר הידרציה (1 מ"מ טריס-HCl, pH 7.5, 200 מ"מ סוכרוז) כדי לקבל ריכוז אמפיפיל סופי של 5 מ"ג/מ"ל (המקביל ל-1.67 מ"מ לפולימרזומים ו-2.14 מ"מ לוסיקולות היברידיות). אם משתמשים בפולימרזומים לשיקום, הוסיפו לבופר ההידרציה 0.1% נתרן כולאט.
אזהרה: נתרן כולאט הוא מגרה קל. הימנעו ממגע עור ממושך ושאיפת אבקה. לטפל בהתאם לגיליון הבטיחות של היצרן (SDS). - מערבולת בעוצמה עד שהסרט מתנתק לחלוטין ותלוי לחלוטין, ויוצר שלפוחיות רב-למלריות (MLVs).
- החזירו את הסרט היבש עם 1 מ"ל בופר הידרציה (1 מ"מ טריס-HCl, pH 7.5, 200 מ"מ סוכרוז) כדי לקבל ריכוז אמפיפיל סופי של 5 מ"ג/מ"ל (המקביל ל-1.67 מ"מ לפולימרזומים ו-2.14 מ"מ לוסיקולות היברידיות). אם משתמשים בפולימרזומים לשיקום, הוסיפו לבופר ההידרציה 0.1% נתרן כולאט.
- מחזורי הקפאה–הפשרה (וזיקולות היברידיות בלבד)
- הנושא מתלים ב-MLV היברידי לחמישה מחזורי הקפאה-הפשרה כדלקמן: הקפאת הדגימות בחנקן נוזלי למשך דקה, הפשרת הדגימות באמבט מים בטמפרטורה של 35 מעלות צלזיוס עד שהן נמסות לחלוטין, ומערבולת ב-2500–3000 סל"ד למשך 30 שניות באמצעות שייקר צינור. חזור על ההליך הזה במשך חמישה מחזורים בסך הכל.
הערה: דלג על שלב זה עבור פולימרזומים טהורים.
אזהרה: חנקן נוזלי (−196 מעלות צלזיוס) עלול לגרום לכוויות קריוגניות קשות. לטפל באזור מאוורר היטב עם ציוד מגן אישי מתאים (כפפות קריוגניות, משקפי מגן ומעיל מעבדה). הימנעו ממגע עם עור ועיניים.
- הנושא מתלים ב-MLV היברידי לחמישה מחזורי הקפאה-הפשרה כדלקמן: הקפאת הדגימות בחנקן נוזלי למשך דקה, הפשרת הדגימות באמבט מים בטמפרטורה של 35 מעלות צלזיוס עד שהן נמסות לחלוטין, ומערבולת ב-2500–3000 סל"ד למשך 30 שניות באמצעות שייקר צינור. חזור על ההליך הזה במשך חמישה מחזורים בסך הכל.
- אקסטרוזיה
- העבר את תליית הווסיקולה למיני-אקסטרודר המצויד בממברנת פוליקרבונט בגודל נקבוב 100 ננומטר.
- יש להוציא את המתלה 21 פעמים כדי לקבל LUVs הומוגניים בגודל.
הערה: ודא ששלב האקסטרוזיה הסופי יוצא מהמתלה של LUV במזרק שממול למזרק הטעינה הראשוני. זה ממזער זיהום הדגימה הסופית עם וזיקולות גדולות יותר או חומר שאריתי שאולי לא עבר במלואו דרך הממברנה.
- אחסון
- אחסן את תליית ה-LUV בטמפרטורה של 4 מעלות צלזיוס והשתמש בו תוך שבוע כדי לשמור על התפלגות גודל הווסיקולות ולמנוע הצטברות או גדילה מיקרוביאלית בבופר המכיל סוכרוז.
- לפני השימוש, יש להומוגן בעדינות את מתלה ה-LUV על ידי וורטקס.
4. שיקום חלבון ממברנה ל-LUVs
- טיפול מקדים של וזיקולות עם חומר ניקוי
- העבר 200 מיקרוליטר של LUVs לצינור מיקרוצנטריפוגה בנפח 2 מ"ל (איור 1). אם משתמשים ב-LUVs היברידיים, הוסף 1 מיקרוליטר של 20% (עם כולאט נתרן כולאט) כדי לקבל ריכוז סופי של 0.1% (w/v). אם משתמשים ב-LUVs פולימריים, אין צורך בחומר ניקוי נוסף שכן נתרן כולאט כבר קיים.
הערה: הכינו את חומר הניקוי באותו בופר שבו השתמשו בניסויים כדי להבטיח תאימות עם הוזיקולות. - ערבבו בעדינות על ידי הקשה קלה על צינור המיקרוצנטריפוגה שלוש פעמים. הימנעו מערבולות עזות או מערבולות, שעלולות ליצור קצף ולהכניס בועות אוויר.
- העבר 200 מיקרוליטר של LUVs לצינור מיקרוצנטריפוגה בנפח 2 מ"ל (איור 1). אם משתמשים ב-LUVs היברידיים, הוסף 1 מיקרוליטר של 20% (עם כולאט נתרן כולאט) כדי לקבל ריכוז סופי של 0.1% (w/v). אם משתמשים ב-LUVs פולימריים, אין צורך בחומר ניקוי נוסף שכן נתרן כולאט כבר קיים.
- הכנסת חלבון לוזיקולות שטופלו בחומרי ניקוי
- הוסף ציטוכרום bo 3 אוקסידאז (למדידות פעילות) או ציטוכרום bo 3 אוקסידאז–ATTO 643 (להדמיית פלואורסצנציה) לוזיקולות שהתבלבלו בדטרגנט כדי להשיג את ריכוזי החלבון הסופיים הבאים: עבור פולימרזומים, 0.556 מיקרומולר לניסויי LUV ו-1.112 מיקרומולר לניסויי GUV; עבור וזיקולות היברידיות, 0.714 מיקרומולר לניסויי LUV ו-1.428 מיקרומולר לניסויי GUV.
הערה: ריכוזים אלו מתאימים ליחס מולר חלבון-פולימר של 1:3,000 עבור LUVs ו-1:1,500 עבור GUVs. - הוסיפו את החלבון לאט תוך ערבוב עדין, במטרה לפזר אותו באופן שווה לאורך התמיסה ולמנוע ריכוז יתר מקומי.
הערה: נפח החלבון המוסף עשוי להשתנות בין חלקים עקב הבדלים בריכוז מלאי החלבון.
- הוסף ציטוכרום bo 3 אוקסידאז (למדידות פעילות) או ציטוכרום bo 3 אוקסידאז–ATTO 643 (להדמיית פלואורסצנציה) לוזיקולות שהתבלבלו בדטרגנט כדי להשיג את ריכוזי החלבון הסופיים הבאים: עבור פולימרזומים, 0.556 מיקרומולר לניסויי LUV ו-1.112 מיקרומולר לניסויי GUV; עבור וזיקולות היברידיות, 0.714 מיקרומולר לניסויי LUV ו-1.428 מיקרומולר לניסויי GUV.
- הרכבת קומפלקסים של חלבון–דטרגנט–פולימר
- דגרו את התערובת בטמפרטורה של 4 מעלות צלזיוס למשך 30 דקות עם ערבוב קל (400 סל"ד) בתרמומיקסר כדי לאפשר היווצרות מרכבי חלבון–דטרגנטה–פולימר מעורבים לפני הסרת חומר הניקוי.
- הסרת חומרי ניקוי
- הסרת חומר ניקוי על ידי הוספת Bio-Beads SM-2 (Bio-Rad) ברצף. הסר 30 מ"ג של חרוזי ביו מתמיסת האחסון, ודא שהם נשארים לחים (רטובים אך ללא נוזלים עודפים). הוסף את החרוזים לדגימה ודגר 30 דקות בטמפרטורה של 4 מעלות צלזיוס עם ערבוב עדין ב-600 סל"ד בתרמומיקסר. חזרו על שלב זה פעמיים נוספות, לסך של 90 מ"ג Bio-Beads וזמן דגירה כולל של 1.5 שעה.
הערה: השתמשו רק בחרוזים ביולוגיים מיובשים לחלוטין. אין להעביר חרוזים יבשים, חרוזים הדביקים לדפנות צינור ה-Bio-Beads או חרוזים הצפים על פני השטח. אם החרוזים נדבקים לדופן צינור התגובה לשיקום מעל רמת הנוזל לאחר ההוספה, יש לצנטריפוגה קצרה את הצינור (למשל, 3–5 שניות במיניצנטריפוגה על שולחן) כדי לאסוף את החרוזים בתחתית לפני הדגירה. - הכדור את חרוזי הביולוגיה בצנטריפוגה בעוצמה של 2,000 × גרם למשך 2 דקות באמצעות צנטריפוגה קטנה על שולחן. אסוף בזהירות את הסופרנטנט מבלי להפריע לכדור החרוזים.
הערה: כחלופה לצנטריפוגה, אפשר לחרוזים לשקוע בכוח הכבידה למשך כ-5 דקות, ואז להסיר בזהירות את הסופרנטנט.
- הסרת חומר ניקוי על ידי הוספת Bio-Beads SM-2 (Bio-Rad) ברצף. הסר 30 מ"ג של חרוזי ביו מתמיסת האחסון, ודא שהם נשארים לחים (רטובים אך ללא נוזלים עודפים). הוסף את החרוזים לדגימה ודגר 30 דקות בטמפרטורה של 4 מעלות צלזיוס עם ערבוב עדין ב-600 סל"ד בתרמומיקסר. חזרו על שלב זה פעמיים נוספות, לסך של 90 מ"ג Bio-Beads וזמן דגירה כולל של 1.5 שעה.
- אחסון
- יש לאחסן bo 3-LUVs משוחזרים בטמפרטורה של 4 מעלות צלזיוס ולהשתמש בהם באותו יום למדידות פעילות חלבון.
5. גודל ופיזור של LUVs לפי פיזור אור דינמי (DLS)
- טעינה של LUVs למדידות DLS
- העבר 45 מיקרוליטר של תליית LUV או פרוטאו-LUV לא מדולל לקובט קוורץ נקי. ודאו שהקובטה נקייה מאבק, טביעות אצבע או שאריות אחרות כדי למזער את פיזור האור.
הערה: הימנעו מהחדרת בועות אוויר, שכן הן עלולות להפריע למדידות DLS. כדי למנוע בועות, הפיפט באיטיות על הדגימה לאורך דופן הקובט ואל תוציא את הטיפה האחרונה בכוח. אם נוצרות בועות קטנות, אפשר להן לעלות ולהתפזר לפני המדידה.
- העבר 45 מיקרוליטר של תליית LUV או פרוטאו-LUV לא מדולל לקובט קוורץ נקי. ודאו שהקובטה נקייה מאבק, טביעות אצבע או שאריות אחרות כדי למזער את פיזור האור.
- קביעת גודל ופיזור LUV באמצעות DLS
- למדוד את קוטר ההידרודינמי ואת מדד הפולידיפיזוריות (PDI) באמצעות מכשיר DLS המצויד בלייזר הליום-ניאון של 633 ננומטר ובזיהוי פיזור אחורי בזווית קבועה של 173°.
- בצע לפחות שלוש מדידות עצמאיות לכל דגימה כדי להבטיח שחזוריות.
- נתח את הנתונים באמצעות מודל כללי (התפלגות נורמלית) כדי לקבל את הגודל הממוצע ואת ה-PDI.
6. ניתוח צריכת חמצן של LUVs
- הגדרת טמפרטורה
- כוון את תא המדידה של מערכת אלקטרודות חמצן מסוג קלארק ל-22 מעלות צלזיוס ואפשר למערכת להתאזן.
- הוספת בופר
- הוסף 1 מ"מ טריס-HCl (pH 7.5), בופר סוכרוז של 200 מ"מ מ' לתא המדידה לנפח כולל של 1,000 מיקרוליטר. כוון את נפח הבופר לפי סוג הדגימה: 942.9 מיקרוליטר לפולימר bo 3-LUVs ו-953.7 מיקרוליטר עבור bo 3-LUVs היברידיים.
הערה: הנפח הנותר יתפוס על ידי LUVs ותערובת DTT/Q₁ כדי להגיע לנפח המדידה הסופי.
- הוסף 1 מ"מ טריס-HCl (pH 7.5), בופר סוכרוז של 200 מ"מ מ' לתא המדידה לנפח כולל של 1,000 מיקרוליטר. כוון את נפח הבופר לפי סוג הדגימה: 942.9 מיקרוליטר לפולימר bo 3-LUVs ו-953.7 מיקרוליטר עבור bo 3-LUVs היברידיים.
- הוספת LUVs
- הוסיפו bo3-LUV לתא המדידה והתחילו לערבב בעדינות באמצעות מערבל מגנטי ב-100 סל"ד ו-22 מעלות צלזיוס. כוונן את נפח bo 3-LUVs כדי להגיע לריכוז תאורטי של bo3 אוקסידאז של כ-27 ננומטר: 48.6 מיקרוליטר ל-bo 3-LUVs פולימריים ו-37.8 מיקרוליטר עבור bo 3-LUVs היברידיים.
הערה: לביקורת שלילית, החליפו bo-3-LUVs בנפח שווה של LUVs ללא חלבון בעלי הרכב וריכוז שומן/פולימר זהים. כל השלבים הבאים נשארים זהים.
- הוסיפו bo3-LUV לתא המדידה והתחילו לערבב בעדינות באמצעות מערבל מגנטי ב-100 סל"ד ו-22 מעלות צלזיוס. כוונן את נפח bo 3-LUVs כדי להגיע לריכוז תאורטי של bo3 אוקסידאז של כ-27 ננומטר: 48.6 מיקרוליטר ל-bo 3-LUVs פולימריים ו-37.8 מיקרוליטר עבור bo 3-LUVs היברידיים.
- מדידת קו הבסיס
- אפשר לריכוז החמצן להתייצב ולמדוד במשך 3 דקות תחת ערבוב מתמיד בטמפרטורה של 22 מעלות צלזיוס כדי לקבל קו בסיס יציב.
- הכנת תערובת הפחתה/קינון
- הכינו מחדש את תערובת DTT/Q₁ מיד לפני השימוש על ידי ערבוב 9.6 מיקרוליטר של 1 מ' DTT במי מילי-Q עם 0.6 מיקרוליטר של 80 מילימטר יוביקווינון-1 (Q₁) ב-DMSO, ואז לבצע מערבולת יסודית כדי להבטיח הומוגניות.
- הפעלת אנזימים
- הפעל bo3 אוקסידאז על ידי הוספת 8.5 מיקרו-ליטר מתערובת DTT/Q₁ הטרייה לתא המדידה, מה שמוביל לריכוזים סופיים של 8 mM DTT ו-40 מיקרומום Q₁.
- שכפולים
- מדוד כל דגימה שלוש פעמים כדי להבטיח שחזוריות.
- ניתוח נתונים
- תשרטט את ריכוז החמצן מול הזמן. קבעו את השיפוע של החלק הליניארי של העקומה, התואם לקצב צריכת החמצן.
- דיווח
- דווח על קצב צריכת החמצן כממוצע של שלוש מדידות, עם סטיית תקן.
7. הכנת GUVs פונקציונליים חלבונים
- ניקוי פלזמה של שקופיות זכוכית מצופות ITO
- הניחו את הזכוכית המצופה בדיל אינדיום (ITO) בתוך מנקה הפלזמה כאשר הצד המוליך (מצופה ITO) פונה כלפי מעלה. פלזמה מנקה אותם למשך דקה אחת בהגדרת הספק גבוהה ("HI") (230 וולט, הספק RF מקסימלי 18 וואט) ולחץ של כ-0.5 מ"בר.
הערה: הצתת פלזמה מוצלחת ניתנת לאישור חזותי על ידי הופעת זוהר ורוד/סגול בתוך החדר.
- הניחו את הזכוכית המצופה בדיל אינדיום (ITO) בתוך מנקה הפלזמה כאשר הצד המוליך (מצופה ITO) פונה כלפי מעלה. פלזמה מנקה אותם למשך דקה אחת בהגדרת הספק גבוהה ("HI") (230 וולט, הספק RF מקסימלי 18 וואט) ולחץ של כ-0.5 מ"בר.
- התייבשות חלקית של פרוטאו-LUVs
- מערבבים 20 מיקרוליטר LUVs ללא חלבון עם 20 מיקרוליטר של פרוטאו-LUVs המכילים bo3 oxidase-ATTO 643 ששוחזר. מערבולת עדינה כדי להבטיח ערבוב הומוגני.
- הפקדו שבע טיפות של 2 מיקרוליטר מההשעיה LUV/פרוטאו-LUV של 5 מ"ג/מ"ל על פני השטח המוליך (מצופה ITO) של כל שקף המשמש לאלקטרופורמציה (איור 2A). פזר את הטיפות באופן שווה על פני משטח ה-160.6 מ"מ 2 , תוך הפרדה ביניהן כדי לקדם יצירת שכבה אחידה.
הערה: במערכות פולימר אחרות, ריכוז LUV ונפח הטיפות עשויים לדרוש אופטימיזציה (טווח טיפוסי: LUVs של 5–100 מ"ג/מ"ל; טיפות 0.2–2 מיקרוליטר). - אפשר לטיפות להתייבש חלקית בטמפרטורת החדר (∼22°C) ולחות של ∼20% למשך כ-40 דקות, או עד שנוצרת טבעת לבנה בהיקף הטיפה (איור 2B).
הערה: התייבשות תלויה בלחות הסביבתית. אם הלחות היחסית מעל 40%, יש להאריך את זמן ההתייבשות לפי הצורך (עד 20 דקות). קבעו את נקודת הסיום בהתבסס על הופעת טבעת לבנה בהיקף הטיפה ולא על בסיס זמן קבוע. בתנאי סביבה עקביים (טמפרטורה ולחות), זמן ההתייבשות הנדרש ניתן לשחזור. הימנע מייבוש יתר, שנראה כטיפות שטוחות ואחידות לבנות לחלוטין, שכן זה עלול לגרום למשקעים של חלבון.
- הרכבת תא האלקטרופורמציה
- הרכיבו את תא האלקטרופורמציה על ידי הצבת שני מחסניות מצופות ITO (צדדים מצופים הפונים פנימה) המופרדים על ידי מרווח סיליקון בעובי 1.81 מ"מ עם חיתוך בצד אחד, המאפשר להוסיף או להסיר בופר במהלך המילוי והאיסוף.
- מלאו את התא בבופר הידרציה (1 מ"מ טריס-HCl, pH 7.5; 200 מ"מ סוכרוז).
לניסויים רגישים ל-pH, הוסף 10 מיקרומום פירנין (8-הידרוקסיפירן-1,3,6-טריסולפוניק חומצה טריסולפונית, מלח HPTS) לבופר.
- אלקטרופורמציה
- הפעילו שדה חשמלי מתחלף סינוסואידלי באמצעות התוכנית הבאה: 50 הרץ בתדרים 50, 100, 200, 300, 500, 700 ו-900 mV למשך 6 דקות כל אחד; 50 הרץ ב-1.1 וולט ל-2 שעות.
הערה: כדי לקדם את היווצרות פרוטאו-GUV גדולים יותר, שלב זה יכול להיות מורחב ל-12 שעות, ו-4 הרץ ב-2 וולט למשך 30 דקות לשלב הניתוק. כאשר המאגר מכיל 10 מיקרומום פירנין, הגדילו את התדר ל-500 הרץ במהלך שני שלבי העלאת המתח הראשונים.
- הפעילו שדה חשמלי מתחלף סינוסואידלי באמצעות התוכנית הבאה: 50 הרץ בתדרים 50, 100, 200, 300, 500, 700 ו-900 mV למשך 6 דקות כל אחד; 50 הרץ ב-1.1 וולט ל-2 שעות.
- אוסף של רכבי ה-GUV
- פתחו בזהירות את התא באמצעות פינצטה ואספו פיפטות GUV באמצעות פיפטות FineTip Ultra-Micro Pastette (או פיפטות העברה נמוכות מקבילות) כדי למזער עומס מכני.
הערה: הימנעו משימוש בקצות פיפטות סטנדרטיות בנפח נמוך מתחת ל-200 מיקרוליטר, שכן אלו עלולות לגרום לפיצוץ GUVs גדולים יותר. לחילופין, ניתן לחתוך קצוות סטנדרטיים בקצה כדי להרחיב את הפתח ולהפחית גזירה במהלך האיסוף.
- פתחו בזהירות את התא באמצעות פינצטה ואספו פיפטות GUV באמצעות פיפטות FineTip Ultra-Micro Pastette (או פיפטות העברה נמוכות מקבילות) כדי למזער עומס מכני.
- אחסון
- אחסן פרוטאו-GUVs בטמפרטורה של 4 מעלות צלזיוס והשתמש בשימוש תוך 48 שעות לשימור פעילות החלבון.
הערה: קצב אובדן הפעילות תלוי בסוג וביציבות חלבון הממברנה המחודש, וכן בהרכב הממברנה.
- אחסן פרוטאו-GUVs בטמפרטורה של 4 מעלות צלזיוס והשתמש בשימוש תוך 48 שעות לשימור פעילות החלבון.
8. מיקרוסקופיה של GUVs פונקציונליים חלבונים
- הגדרת מיקרוסקופ
- תדליק את המיקרוסקופ הקונפוקלי. אם משתמשים במערכת Leica, הפעל את תוכנת LAS X. למותגי מיקרוסקופים אחרים, השתמשו בתוכנת הרכישה המומלצת על ידי היצרן.
- בחר מטרה לטבילה בשמן 63× (NA 1.40); כוון להגדלה גבוהה או נמוכה יותר במידת הצורך, בהתאם לגודל ה-GUV.
- פתח שני ערוצי הדמיה התואמים לפלואורופורים: רודמין רד (ממברנה) ו-ATTO 643 (חלבון משוחזר).
הערה: עבור פלואורופורים עם ספקטרום חופף חלקית, בחרו קווי לייזר מתאימים וחלונות גילוי צרים כדי למזער דיבור ספקטרלי. רכוש כל ערוץ ברצף כדי למנוע דליפת אות ולהבטיח כימות פלואורסצנציה מדויק.
- שקיעה של מערכות GUV
- הניחו מבודד סיליקון לחיצה לאיטום על כיסוי זכוכית נקי מס' 1.5 (עובי 0.17 מ"מ).
הערה: למיקרוסקופים עומדים (לא הפוכים), ניתן להשתמש במגשישי זכוכית עבים יותר. - פיפט 60 מיקרוליטר של בופר (1 mM Tris-HCl, pH 7.5; 200 mM גלוקוז) למרכז המרווח.
- הוסיפו בעדינות 20 מיקרוליטר של מתלי ה-GUV מעל הבופר.
- כסה מיד את התא במחסנית זכוכית שנייה כדי למנוע אידוי.
- תן ל-GUVs לשקוע ~5 דקות לפני ההדמיה.
- הניחו מבודד סיליקון לחיצה לאיטום על כיסוי זכוכית נקי מס' 1.5 (עובי 0.17 מ"מ).
- רכישת תמונה
- התמקד בתחתית התא כדי ללכוד חתכי רוחב של ה-GUVs.
- לצלם תמונות של GUVs שונים ברחבי החדר על ידי סריקה שיטתית מהפינה השמאלית העליונה לפינה הימנית התחתונה (דפוס "נחש") כדי לקבל אוכלוסייה מייצגת (~100 GUVs). תדמיין את כל הוזיקולות שנפגשו במהלך הסריקה ללא בחירה מוקדמת, ללא קשר לגודל או לעוצמת הפלואורסצנציה, כדי למנוע הטיית בחירה ולהבטיח שחזוריות.
הערה: הימנעו מהדמיה חוזרת של אותו GUV כדי למנוע פוטובלינציה.
- ניתוח תמונה
- כימות את עוצמת הפלואורסצנציה של חלבון מסומן ב-ATTO 643 שחזר על ידי ציור פוליליין לאורך הממברנה של GUVs בודדים. בעת שימוש בתוכנת LAS X, בחר Quantify → Line Profile, ואז בחר את כלי הפוליליין ועקוב אחרי הממברנה של כל GUV. כדי לקבל את עוצמת הפלואורסצנציה הממוצעת, יש לפתוח את סטטיסטיקה ולרשום את הערך הממוצע. לנתח רק GUVs נקיים וחד-למלריים; יש להוציא וזיקולות רב-וזיקולריות וזיקולות מצטברות מהניתוח.
הערה: אם המדידות נרכשות בימים שונים, יש לנרמל את עוצמות הפלואורסצנציה לעוצמת הלייזר, ונמדדות תחת הגדרות דימות זהות (אורך גל ועוצמה נומינלית). כדי להתחשב בשינויים היומיומיים בתפוקת הלייזר, מיישמים את הנרמול הבא: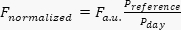 , כאשר Fa.u. היא עוצמת הפלואורסצנציה הנמדדת ביחידות שרירותיות, Pהתייחסות היא עוצמת הלייזר שנמדדה ביום הייחוס, והיא עוצמת הלייזר שנמדדה ביום הרכישה. תיקון זה מניח קשר ליניארי בין עוצמת הלייזר לעוצמת הפלואורסצנציה בתנאי תאורה שאינם רוויים. במחקר הנוכחי, כל התמונות צולמו באותו יום, ולכן לא נדרשה נורמליזציה.
- דווח על עוצמת הפלואורסצנציה כממוצע של 100 GUVs עם סטיית התקן המתאימה.
- כימות את עוצמת הפלואורסצנציה של חלבון מסומן ב-ATTO 643 שחזר על ידי ציור פוליליין לאורך הממברנה של GUVs בודדים. בעת שימוש בתוכנת LAS X, בחר Quantify → Line Profile, ואז בחר את כלי הפוליליין ועקוב אחרי הממברנה של כל GUV. כדי לקבל את עוצמת הפלואורסצנציה הממוצעת, יש לפתוח את סטטיסטיקה ולרשום את הערך הממוצע. לנתח רק GUVs נקיים וחד-למלריים; יש להוציא וזיקולות רב-וזיקולריות וזיקולות מצטברות מהניתוח.
9. ניתוח שאיבת פרוטונים ב-proteo-GUVs
- הגדרת מיקרוסקופ
- הפעל את המיקרוסקופ הקונפוקלי והשיק את תוכנת הרכש המתאימה (למשל, LAS X למערכות Leica).
- בחר מטרה לטבילה בשמן בקוטר 63× (NA 1.40). כוון להגדלה גבוהה או נמוכה יותר אם צריך, תלוי בגודל ה-GUV.
- הגדר שלושה ערוצי הדמיה התואמים לפלואורופורים. עבור רודמין אדום (סמן ממברנה), יש להשתמש בגירוי של 561 ננומטר ובטווח פליטה של 570–620 ננומטר. לפירנין (צבע רגיש ל-pH בכיסוי), השתמש בגירורים ב-448 ננומטר ו-405 ננומטר, ואסף פליטה על פני 499–551 ננומטר.
הערה: אם יש לייזר 458 ננומטר זמין, יש להשתמש בו במקום 448 ננומטר כדי לעורר את הצורה הבסיסית (דה-פרוטונית) של הפירנין. - כוון את עוצמת הלייזר והגבר הגלאי כדי להימנע מרוויית פיקסלים ולמזער הלבנת פוטו. שמור על הגדרות רכישה קבועות לאורך כל הניסוי.
- שקיעה של מערכות GUV
- הוסף 280 מיקרוליטר של בופר (1 mM Tris-HCl, pH 7.5; 200 mM גלוקוז) לבאר אחת של סלייד עם 8 תאים (נפח באר כולל: ~874 מיקרוליטר).
הערה: אין להשתמש בפחות מ-200 מיקרוליטר, שכן נפחים מתחת ל-200 מיקרוליטר מגדילים את האידוי ואת סטיית ה-pH. אין לעלות על 400 מיקרוליטר כדי למנוע דליפות ולהבטיח פיפטינג נוח. אם משתמשים בפורמט תא שונה, כוון את הווליום בהתאם. למיקרוסקופים הפוכים, השתמשו במחסניות תא התואמות לעובי כיסוי #1.5H. - הוסיפו בעדינות 20 מיקרוליטר של מתלה bo 3-GUV מעל הבופר מבלי להכניס בועות אוויר.
הערה: לשליטה שלילית, החליפו את תליית bo 3-GUV בנפח שווה ערך (20 מיקרוליטר) של GUVs ללא חלבון בעלי אותו הרכב שומן/פולימר, מוכנים ומשקעים בתנאים זהים. בקרה זו מתעדכנת בכל השפעות לא ספציפיות של DTT ו-Q1 על יחס הפלואורסצנציה של הפירנין, שהן בלתי תלויה בפעילות bo3 אוקסידאז. - אפשר ל-GUVs לשקוע במשך כ-5 דקות לפני ההדמיה.
- הוסף 280 מיקרוליטר של בופר (1 mM Tris-HCl, pH 7.5; 200 mM גלוקוז) לבאר אחת של סלייד עם 8 תאים (נפח באר כולל: ~874 מיקרוליטר).
- רכישת בסיס
- התמקד במישור התחתון של התא שבו ה-GUVs שקעו.
- כוון את הזום כדי לקבל 3–6 GUVs בשדה הראייה.
- הקלט פלואורסצנציה בסיסית בכל הערוצים במשך 5 דקות לפני ההפעלה.
- הפעלת שאיבת פרוטונים
- הכינו תערובת DTT–Q₁ טרייה מיד לפני השימוש על ידי ערבוב 4.8 מיקרוליטר של 1 M DTT עם 0.3 מיקרוליטר של 80 mM Q₁ ב-DMSO, ואז ערבוב היטב באמצעות מערבוב.
- הפעל ציטוכרום bo 3 אוקסידאז על ידי הוספת עדינה של 2.6 מיקרוליטר מתערובת DTT–Q₁ על פני השטח של התמיסה מבלי להכניס את קצה הפיפטה לבופר, מה שמוביל לריכוזים סופיים של כ-8 mM DTT ו-40 מיקרומום Q₁ בתא.
- מעקב אחרי פלואורסצנציה תוך-וזיקולרית של פירנין במשך 30 דקות תחת רכישה רציפה.
- ניתוח פלואורסצנציה תוך-וזיקולרית פירנין
- עבור כל GUV, הגדר אזור עניין (ROI) בתוך לומן הווסיקולה. בתוכנת LAS X, עבור ל-Quantify → Stack Profile, בחר Draw Ellipse, וצייר ROI מעגלי בתוך כל GUV.
- כדי לקבוע את עוצמת הפלואורסצנציה הממוצעת ב-499–551 ננומטר עבור שני אורכי הגל של העירור (448 ננומטר ו-405 ננומטר), פתח את סטטיסטיקה בתוכנה ורשם את הערך הממוצע.
- חשב את יחס הפלואורסצנציה כ-R = I448/I405.
- צייר את היחס לאורך זמן כדי לקבל עקבות קינטיות של שינוי pH תוך-ווסיקולרי.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
האוקסידאז של E. coli ציטוכרום bo 3 הובע מפלסמיד pETcyo בזן E. coli C43 (DE3) ΔcyoABCDE וטוהר כפי שתואר קודם29. bo3 אוקסידאז מטוהר שימש ישירות למדידות שיקום ופעילות, או סומן בצבעים פלואורסצנטיים, כמו ATTO 643 (מחקר זה) או צבעי ATTOאחרים 1,15. לצבעים הידרופיליים מאוד כמו ATTO 643, נעשה שימוש בעמודה של 30 ס"מ להשגת הפרדה יעילה של צבע לא קשור לחלבון מסו...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
פולימרזומים ווזיקולות היברידיות של פולימר/ליפידים מציגים יציבות כימית ומכנית משופרת בהשוואה לוזיקולות ליפידים קונבנציונליות, מה שהופך אותם לאטרקטיביים במיוחד ליישומים הנעים מהעברת תרופות וחישה ביולוגית ועד ננו-ריאקטורים ותאים מלאכותיים. עם זאת, ארכיטקטורת הממברנה הייחודית והתכונות הביופיזיקליות שלהן לעיתים מונעות העברה ישירה של פרוטוקולים מותאמים לוזיקולות ליפידים למערכות מבוססות פולימר 15,20,30.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים שאין להם אינטרסים פיננסיים מתחרים.
תודות
מחקר זה נערך במסגרת בית הספר מקס פלאנק Matter to Life, בתמיכת קרן דיטר שוורץ בשיתוף עם אגודת מקס פלאנק. אנו מודים לקלאודיה בדנארז על הבידוד והטיהור של ציטוכרום bo3 אוקסידאז, ולאן כריסטין ויינריך על סיועה בהכנת וזיקולות ומיקרוסקופיה.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| ÄKTA pure™ chromatography system | Cytiva | 29018224 | |
| 18:1 Liss Rhod PE | Avanti Research | 810150 | |
| 8 well chambered coverglass | Cellvis | C8-1.5H-N | |
| Amicon Ultra 0.5 mL Centrifugal Filters | Sigma Aldrich | UFC5030 | |
| ATTO 643 NHS ester | ATTO-TEC | AD 643-31 | |
| Bio-Beads SM-2 | Bio-Rad | 1523920 | |
| Cholic acid-Na-salt (sodium cholate) | Serva | 361-09-1 | |
| Coenzyme Q1 | TargetMol | TGM-T19594 | |
| Confocal microscope STELLARIS 5 | Leica Microsystems | 603810 | |
| DTT (Dithiothreitol) | Merck | 10197777001 | |
| Fine Tip Ultra Micro Pastette | Pastette | LW4243 | |
| HPTS (pyranine, 8-Hydroxypyrene-1,3,6-Trisulfonic Acid, Trisodium Salt) | Sigma Aldrich | 6358-69-6 | |
| ITO-coated glass slides (25×75×1.1 mm, ≤20 Ohm/sq.) | pgo | CEC020S | |
| LAS X software | Leica | https://www.leica-microsystems.com/products/microscope-software/p/leica-las-x-ls/ | |
| Mini centrifuge MCF-2360 | LMS | 24572 | |
| Mini-extruder | Avanti Research | 610000 | |
| Oxytherm+P system | Hansatech Instruments | / | |
| Plasma cleaner (benchtop) | Harrick Plasma | PDC-32G-2 | |
| Polycarbonate membranes 0.1 μm | Avanti Research | 610005 | |
| Press-to-seal silicone isolator (round, 20 mm diameter, 1 mm depth) | Grace Bio-Labs | 41161502 | |
| Silicone spacers (round, 24.2 mm outer diameter, 14.3 mm inner diameter, 1.8 mm depth) | מיוצר במעבדה, חתוך מגיליון סיליקון | ||
| Soy PC (95%) | Avanti Research | 441601 | |
| Specord 50 PLUS spectrophotometer | Analytik Jena | 823-0200P-3 | |
| Superdex 200 10/300 GL column (column L × I.D. 30 cm × 10 mm) | Cytiva | 28-9909-44 | |
| Test tube shaker (2800 rpm) | IKA Lab Dancer | 3365000 | |
| Thermomixer comfort 5355 | Eppendorf | 5355000.011 | |
| Xiameter OFX-5329 (PDMS-g-PEO; MW 3000) | Dow Corning | 000000000004109892 | |
| Zetasizer Nano ZS | Malvern Panalytical | ZEN3600 |
מקורות
- Marušič N, et al. Constructing artificial respiratory chain in polymer compartments: Insights into the interplay between bo3 oxidase and the membrane. Proc Natl Acad Sci U S A. 2020;117(26):15006-17.
- Bermudez H, Brannan AK, Hammer DA, Bates FS, Discher DE. Molecular Weight Dependence of Polymersome Membrane Structure, Elasticity, and Stability. Macromolecules. 2002;35(21):8203-8.
- Otrin L, et al. Toward Artificial Mitochondrion: Mimicking Oxidative Phosphorylation in Polymer and Hybrid Membranes. Nano Lett. 2017;17(11):6816-21.
- Otrin L, et al. En route to dynamic life processes by SNARE-mediated fusion of polymer and hybrid membranes. Nat Commun. 2021;12(1):4972.
- Itel F, Najer A, Palivan CG, Meier W. Dynamics of Membrane Proteins within Synthetic Polymer Membranes with Large Hydrophobic Mismatch. Nano Lett. 2015;15(6):3871-8.
- Goers R, et al. Optimized reconstitution of membrane proteins into synthetic membranes. Commun Chem. 2018;1(1):35.
- Nardin C, Thoeni S, Widmer J, Winterhalter M, Meier W. Nanoreactors based on (polymerized) ABA-triblock copolymer vesicles. Chem Commun. 2000;(15):1433-4.
- Einfalt T, et al. Stimuli-Triggered Activity of Nanoreactors by Biomimetic Engineering Polymer Membranes. Nano Lett. 2015;15(11):7596-603.
- Ranquin A, Versées W, Meier W, Steyaert J, Van Gelder P. Therapeutic Nanoreactors: Combining Chemistry and Biology in a Novel Triblock Copolymer Drug Delivery System. Nano Lett. 2005;5(11):2220-4.
- Ihle S, et al. Nanocompartments with a pH release system based on an engineered OmpF channel protein. Soft Matter. 2011;7(2):532-9.
- Kumar M, et al. Highly permeable polymeric membranes based on the incorporation of the functional water channel protein Aquaporin Z. Proc Natl Acad Sci U S A. 2007;104(52):20719-20724.
- Choi HJ, Montemagno CD. Artificial Organelle: ATP Synthesis from Cellular Mimetic Polymersomes. Nano Lett. 2005;5(12):2538-42.
- Khan S,et al. Durable proteo-hybrid vesicles for the extended functional lifetime of membrane proteins in bionanotechnology. Chem Commun. 2016;52(73):11020-3.
- Kleineberg C, et al. Light-Driven ATP Regeneration in Diblock/Grafted Hybrid Vesicles. Chembiochem. 2020;21(15):2149-60.
- Otrin N, et al. Protein-Rich Rafts in Hybrid Polymer/Lipid Giant Unilamellar Vesicles. Biomacromolecules. 2024;25(2):778-91.
- Marušič N, et al. Increased efficiency of charge-mediated fusion in polymer/lipid hybrid membranes. Proc Natl Acad Sci U S A. 2022;119(20):e2122468119.
- Marušič N,et al. Fusion-Induced Growth of Biomimetic Polymersomes: Behavior of Poly(dimethylsiloxane)-Poly(ethylene oxide) Vesicles in Saline Solutions Under High Agitation. Macromol Rapid Commun. 2022;43(5):2100712.
- Rigaud JL, Pitard B, Levy D. Reconstitution of membrane proteins into liposomes: application to energy-transducing membrane proteins. Biochim Biophys Acta. 1995;1231(3):223-46.
- Catania R,et al. Detergent-Free Functionalization of Hybrid Vesicles with Membrane Proteins Using SMALPs. Macromolecules. 2022;55(9):3415-22.
- Otrin L. Bottom-up construction of the artificial mitochondrion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2021.
- Manneville JB, Bassereau P, Ramaswamy S, Prost J. Active membrane fluctuations studied by micropipet aspiration. Phys Rev E Stat Nonlin Soft Matter Phys. 2001;64(2 Pt 1):021908.
- Dezi M, Di Cicco A, Bassereau P, Lévy D. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Natl Acad Sci U S A. 2013;110(18):7276-81.
- Sjoholm J, et al. The lateral distance between a proton pump and ATP synthase determines the ATP-synthesis rate. Sci Rep. 2017;7(1):2926.
- Biner O, Schick T, Muller Y, von Ballmoos C. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 2016;590(14):2051-62.
- Girard P,et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 2004;87(1):419-29.
- Nordlund G, Brzezinski P, von Ballmoos C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 2014;5(1):4303.
- Otrin N. A Modular Platform for Growth of Hybrid and Polymer Membrane Systems by Vesicle Fusion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2022.
- Otrin L, et al. Artificial Organelles for Energy Regeneration. Adv Biosyst. 2019;3(6):1800323.
- Frericks HL, Zhou DH, Yap LL, Gennis RB, Rienstra CM. Magic-angle spinning solid-state NMR of a 144 kDa membrane protein complex: E. coli cytochrome bo3 oxidase. J Biomol NMR. 2006;36(1):55-71.
- Seneviratne R, et al. A reconstitution method for integral membrane proteins in hybrid lipid-polymer vesicles for enhanced functional durability. Methods. 2018;147:142-9.
- Aimon S,et al. Functional reconstitution of a voltage-gated potassium channel in giant unilamellar vesicles. PLoS One. 2011;6(10):e25529.
- Dolder N, Müller P, von Ballmoos C. Experimental platform for the functional investigation of membrane proteins in giant unilamellar vesicles. Soft Matter. 2022;18(31):5877-93.
- Zhao Z,et al. Super-Resolution Imaging of Highly Curved Membrane Structures in Giant Vesicles Encapsulating Molecular Condensates. AdvMater. 2022;34(4):2106633.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב