שיטה הניתנת להתאמה אישית להחדרת חלבונים חיסוניים מופרשים לתוך מוח של עכבר חי, לצורך אפיון זמני ומרחבי של אינטראקציות נוירו-אימוניות.
מאמר שיטה
הובלה תוך-גולגולתית ממוקדת של מולקולות חיסוניות מופרשות לבחינת אינטראקציות נוירו-אימוניות
במאמר זה
סיכום
תקציר
אף על פי שכידוע השפעתם של חלבונים חיסוניים מופרשים על תפקוד מערכת העצבים הולכת וגוברת, עדיין קיימים חסמים טכניים בהגדרת הדינמיקה המרחבית-זמנית שלהם בתוך הסביבה המורכבת של המוח. לדוגמה, מיקרוגליה, אוכלוסייה של תאי חיסון מרכזיים במוח, משחררת מגוון גורמים המקיימים אינטראקציה עם מטרות תאיות מגוונות רבות. חלבונים שמקורם במיקרוגליה יכולים לסמן לסוגי תאים אחרים via מנגנונים כגון קישור לקולטן שטח ללא הפנמה, הובלה פסיבית דרך הממברנה, ספיגה פגוציטית או ספיגה המתווכת על ידי אנדוציטוזה. כאן מוצגת שיטה להעברה מקומית של חלבון מופרש שמקורו במיקרוגליה כדי לנתח מנגנונים של אינטראקציה תאית ותוצאות תפקודיות המשך in vivo. אנו מתארים כיצד להכין דגימות חלבון להעברה, כיצד לבצע הזרקה סטריאוטקסיס של חלבון לאזורי מוח מטרתים, ושיטות עבודה מומלצות לאיסוף והכנה של רקמת מוח לצורך ויזואליזציה של חלבונים הרגישים לקיבוע באמצעות אימונוהיסטוכימיה. גישה זו מספקת מסגרת רב-גונית למחקרים מבוקרים מרחבית וזמנית של תקשורת נוירו-אימונית, ומאפשרת חקירה מנגנונית של האופן שבו חלבונים ממקור חיסוני מווסתים באופן דינמי את תפקוד הנוירונים והמוח.
מבוא
תקשורת נוירו-אימונית, או השיח המולקולרי בין מערכת העצבים למערכת החיסון, הוכרה רק לאחרונה כחיונית להבנת הבריאות והמחלה. המוח, שבעבר נחשב למוגן במידה רבה מפני פעילות מערכת החיסון1,2, מוכר כיום כבעל נישות אימוניות דינמיות ביותר, המאפשרות למערכת העצבים לשלוח ולקבל אותות חיסוניים בכל רחבי הגוף3. תקשורת דו-כיוונית חסונה זו מתווכת לרוב על ידי תאים בעלי יכולת חיסונית החיים במוח או בממשקים של מערכת העצבים, כגון ה-choroid plexus, הקרומיות (meninges) והחללים הפרי-וסקולריים4. עם זאת, בתוך הפרנכימה של המוח, סיגנל אימוני מתווך בעיקר על ידי מיקרוגליה, המקרופאגים תלויי-רקמה ארוכי החיים המנביטים את המוח בשלב ההתפתחות העוברית. למרות שהם נחקרים לעיתים קרובות בניסויים תוך דגש מיוחד על תפקודי הפגוציטוזה שלהם, תאי המיקרוגליה מקיימים אינטראקציה הן עם סביבתם המיידית והן למרחקים ארוכים באמצעות שחרור מגוון רחב של פקטורים חיסוניים5.
מידול של מצבים מורכבים ומולטי-פקטוריאליים כמו זיהומים, פגיעות ומחלות in vivo, למרות יתרונו במתן הבנה הוליסטית של מערכת העצבים תחת עומס, מוביל למפל של גורמים עם השלכות נרחבות ומגוונות שעלול להיות קשה להפריד ביניהן. יתרה מכך, בהינתן ההטרוגניות הגבוהה בין תאים באזורי מוח שונים, זיהוי השחרור הסיבתי וההשפעות הנלוות של גורמים בודדים נותר מאתגר. בעוד שכלים כגון וקטורים לנטי-ויראליים וויראליים אסוציאטיביים-אדנו (AAV), המאפשרים ביטוי יתר של גורמים ספציפיים בעקבות הדבקה מדויקת למיקום, אפשרו חקירה של תפקידיהם של גורמים מופרשים מתאי מוח אחרים, כגון נוירונים ואסטרוציטים, במגוון הקשרים, מיקרוגליה נותרה עד כה קשה למודולציה ספציפית וחזקה בדרך זו6. לפיכך, היכולת להעביר מולקולות איתות שמקורן במיקרוגליה למיקום מוגדר במוח מספקת שיטה שימושית להפרדת תפקידיהם המדויקים והשלכותיהם בהקשרים שונים.
מטרת שיטה זו היא להוביל גורמים המופקים ממיקרוגליה לתוך מוחו של עכבר חי באופן מרחבי-זמני, וזאת כדי לאפשר חקירה המשכית של ההשפעות הפונקציונליות של חלבון או מולקולה רלוונטיים. יתרה מכך, שיטה זו למתן תוך-גולגולת ניתנת להתאמה להקשרים ולשאלות מחקר רבות אחרות, כגון באמצעות מתן משולב של גורמים מרובים, כגון גורמי חיסון בעלי השפעה הדדית או מעכבים, או חקירת תגובות רקמה לאורך מסלול זמן רלוונטי. בעוד שפרוטוקול זה יתאר איסוף והכנה של רקמות עבור נקודות קצה של אימונוהיסטוכימיה, ניתן לשלב עם שיטת מתן זו מגוון של נקודות קצה מוחיות אחרות, כגון איסוף דגימות רקמה (punches) בהקפאה מהירה מאזור מוחי רלוונטי עבור qPCR או לבדיקת שפע חלבונים. באמצעות Western blot או ELISA, או ביצוע רישומים אלקטרופיזיולוגיים של פעילות נוירונלית באזור מוזרק במוח.
פרוטוקול
כל ההליכים הכוללים בעלי חיים בוצעו בהתאם למדריך של המכונים הלאומיים לבריאות (National Institutes of Health) לטיפול בבעלי חיים במעבדה ובמסגרת פרוטוקולים שאושרו על ידי הוועדה המוסדית לטיפול בבעלי חיים ולשימוש בהם (IACUC) במוסד המחקר. כל ההליכים המתוארים כאן נבחנו ואושרו על ידי ה-IACUC באוניברסיטת Duke. הריאגנטים והציוד שנעשה בהם שימוש מפורטים ב- טבלת חומרים.
1. (אופציונלי) הכנת חומר ההזרקה עם הסימון הרצוי
- רכוש, בודד או צור גרסה מטוהרת של החלבון החסוני או המולקולה הרלוונטית (ראה Discussion להנחיות בנוגע לאופטימיזציה של חלבונים והמלצות לתיקוף).
- במידת הצורך, קבע את אסטרטגיית הסימון הטובה ביותר בהתבסס על המבנה הכימי של החלבון. לדוגמה, אם דומיינים או אזורים ספציפיים בחלבון דרושים לתפקודו, הימנע מצימוד באתרים אלה. יש לבצע תיקוף של תפקוד חלבון תקין לאחר הסימון.
הערה: עבור חלבונים מטוהרים, גישות נפוצות לסימון כימי כוללות צימוד לקבוצות תיול, בדרך כלל בשארירי ציסטאין (צבעי maleimide או iodoacetamide) או לקבוצות אמין, בדרך כלל בשארירי ליזין (N-hydroxysuccinimide (NHS) ester או צבעי isothiocyanate) לפי הנחיות היצרן. ניתן לרכוש ערכות מספקים סטנדרטיים לביצוע הצימוד.- וודא שכל צבע חופשי הוסר, למשל על ידי סבב של חלבונים וצבע דרך עמודה בגודל מתאים כדי ללכוד את החלבון ולאפשר מעבר של כל צבע שאינו קשור לפני השימוש.
- לחלופין, סמן גנטית חלבונים רלוונטיים לזיהוי, בטא אותם בתאים הרלוונטיים, ולאחר מכן טהר אותם. התג יכול להיות מחובר ישירות לחלבון או מחובר באמצעות מקשר (linker) גמיש, כאשר אפשרויות נפוצות כוללות חלבונים פלואורסצנטיים (למשל, eGFP, tdTomato, mCherry) ותגי סימון עצמי (למשל, HaloTag, SNAP-tag).
- חלק את החלבונים למנבים (aliquots) כדי למנוע מחזורי הקפאה-הפשרה שעלולים לגרום לנזק. לתוצאות מיטביות, בצע תיקוף לתפקוד חלבון תקין עבור כל מספר של מחזורי הקפאה-הפשרה לפני שימוש in vivo. אחסן ב-80 °C-.
הערה: חלבון לא מסומן עשוי להספיק במקרים שבהם אין צורך בהבחנה בין חלבון אנדוגני לאקסוגני (כלומר, הזרקה למודל מכרס knockout). יש לבצע בדיקה אמפירית כדי למקסם את תנאי הניסוי.
2. הכנת הציוד להליך הכירורגי
- אספו את כלי הניתוח הבאים למכל העמיד לאוטוקלאב יחד עם רצועת אינדיקציה לאדי מים: ידית סקלפל, פינצטה, מספריים קטנים, המוסטט, מקדח (1.35 mm), וסדין כירורגי לטכניקת עיקר ששמורה רק לקצוות הכלים. עקרו את כלי הניתוח באמצעות אוטוקלאב בטמפרטורה של 121 °C בלחץ של 15–20 psi למשך 30 min.
- חומרים נוספים דרושים: מקלוני צמר סטריליים, תמיסת פובידון-יוד, אתנול 70%, סליין 0.9%, איזופלורן, מיקרופיפטות זכוכית מומשכות, להבי סקלפל סטריליים, קרם להסרת שיער, חומר סיכה לעין, דבק לרקמות או תפרי ניתוח, פד חימום, מאזניים, תרופות מוכנות ומזרקי אינסולין, ויומן ניתוחים.
- להכנת מיקרופיפטות זכוכית מומשכות, בחרו קפילרה מזכוכית שקוטרה החיצוני מתאים למזרק, בדרך כלל סביב 1.0 mm, וקוטרה הפנימי הוא בין 0.5 mm ל-0.8 mm. העמיסו אותה למכשיר משיכה של פיפטות (pipette puller), ואז משכו תוך שימוש בהגדרות שיובילו לקבלת קצה חרוטי צר אך חזק (הגדרות אלו תלויות במכשיר הספציפי ודורשות אופטימיזציה אינדיבידואלית).
הערה: לעיתים קרובות, טמפרטורה נמוכה יותר עוזרת למנוע קצה ארוך וגמיש שעלול להתכופף בעת הכניסה לפארנכימה, וכוח משיכה נמוך או בינוני עוזר למנוע פתיחת קצה צרה מדי, שעלולה לגרום לסתימה או להתנגדות להזרקה. השתמשו במיקרוסקופ דיסקציה כדי לבחון את כל קצוות הפיפטות המומשכות, והשתמשו בפינצטה עדינה כדי לקצץ בעדינות את פתיחת הקצה כך שיישאר קוטר פנימי של כ-20 µm. אם אתם משתמשים במכשיר להשחזה (beveling instrument), השתמשו בזווית של פחות מ-35°. - הביאו את הכלים שעברו עיקור באוטוקלאב, את החומרים הנוספים ואת החלבון להזרקה על קרח אל מרחב הניתוח (איור 1A). פתחו את הכלים שעברו עיקור בזהירות על מגבת ניתוח, והניחו את קצוות כל הכלים במרכז השטח הסטרילי המיועד (איור 1B,C). השתמשו בהמוסטט כדי להניח את המקדח במרכז השטח. הצמידו להב סקלפל סטרילי לידית והשאירו את קצה הלהב בשטח הסטרילי.
- חממו מראש את פד החימום ל-37 °C והפעילו את מכשיר עיקור החרוזי (bead sterilizer) אם אתם מבצעים מספר ניתוחים.
- מלאו את קצה המיקרופיפטה בשמן מינרלי באמצעות מחט בעלת כילה דקה, תוך הבטחה שאין בועות לאורך כל הפיפטת הזכוכית. העמיסו את פיפטת הזכוכית על המיקרו-מזרק, ורוקנו בזהירות את נפח החלבון שתעמיסו. העמיסו את החלבון הרלוונטי בנפח המבוסס על המלצות שפורסמו7 לתוך המזרק, ולאחר מכן הניחו את המזרק בצד.
3. הליך ניתוח סטריאוטקסי
הערה: כל הניתוחים בוצעו בחדר ניתוחים בעל אוורור גבוה, וכל אנשי הצוות ענדו ציוד מיגון אישי הכולל כפפות, מסכות פנים, כיסויי שיער, כיסויי נעליים וחלוקים. חשיפה לגז Isoflurane מהווה סיכון בריאותי ולכן דורשת מערכת שאיבה (scavenging system), כגון מכלים של פחם פעיל, אותם יש לשקול לפני ואחרי השימוש ב-isoflurane. יש לוודא שכל הציוד, כגון מאייד ההרדמה, מערכות האוורור וציוד השאיבה, מאושר ומכויל כראוי לפני השימוש.
- ודאו כי מאייד ההרדמה מלא בנפח המתאים של isoflurane והגדירו את ספיקת החמצן לקצב של 1 ל'/דקה. רשמו את משקלו של העכבר לפני הנחתו בתא isoflurane שהוגדר לקצב אספקה של 3.5%–4%. רשמו את זמן תחילת הניתוח.
- יש לנטר את בעל החיים כדי לזהות ירידה בקצב הנשימה, ולאחר מכן לאשר הרדמה מלאה על ידי היעדר רפלקס לצביטה באצבעות. לאחר ההרדמה המלאה, יש להעביר את בעל החיים למסכת חימום על מכשיר הסטריאוטקס (stereotax) לקבלת זרימה קבועה של 2% isoflurane בקצב של 1 לטר לדקה דרך חרוט אף. יש להתאים את זרימת ה-isoflurane לפי הצורך, בהתבסס על קצב הנשימה של בעל החיים.
- מרחו שכבה נדיבה של חומר סיכוך לעיניים בעדינות על כל עין. עקבו אחר חומר הסיכוך לאורך כל הניתוח כדי לוודא שהעיניים נותרות מכוסות לחלוטין. מרחו שוב לפי הצורך.
- באמצעות מקלוני צמר גפן סטריליים, מרחו קרם להסרת שיער על קדקודו של הראש ועסו אותו לתוך הפרווה. לאחר מריחת קרם הסרת השיער, השתמשו במקלונים טבולים בתמיסת סליין (מי מלח) בריכוז 0.9% כדי להסיר הן את הקרם והן את פרוות הראש. חזרו על תהליך מריחת קרם הסרת השיער והסרתו עד להסרה מלאה של כל הפרווה מקדקודו של הראש.
הערה: יש להיזהר לא למרוח קרם להסרת שיער על עור חשוף שבו כבר הוסר הפרווה, ולא להשאיר את הקרם שנספג בפרווה למשך יותר מ-3 דקות בכל פעם. חשיפה ממושכת לקרם להסרת שיער עלולה לגרום לכוויות בעור. - יש להעניק כמות מתאימה של משככי כאבים טרום-ניתוחיים בהתאם למשקלו של בעל החיים. המינון המדויק של משככי הכאבים, נתיב המתן והעיתוי דורשים סקירה ואישור של ה-IACUC. במחקר זה נעשה שימוש ב-4 מג/ק"ג של meloxicam. באמצעות הזרקה תת-עורית, הניתנת בתחילת הניתוח.
- קבעו את ראש החיה בחוזקה בין מוטות האוזניים (earbars), תוך שמירה על הגולגולת במצב שטוח ואחיד ככל האפשר. לחצו בעדינות על ראש החיה כדי לוודא שאין תזוזה. אם הראש שוקע או זז, הידקו מחדש את מוטות האוזניים עד להשגת קיבוע מלא.
- בעזרת מקלוני צמר סטריליים, מרחו Betadine על הראש בתנועה סיבובית מהמרכז כלפי חוץ, ולאחר מכן חזרו על הפעולה עם אתנול 70%.
- חזור על יישום ה-povidone-iodine, ולאחר מכן יישם אתןול 70% פעמיים נוספות, לסך הכל 3 יישומים.
הערה: מעתה השטח נחשב לשדה סטרילי, ורק מכשירים שעברו סטריליזציה רשאים להיכנס לאזור. - השתמשו בסקלפל כדי לבצע חתך אנכי, בתנועה אחת רציפה, מגובה מעט מעל החלק העליון של העיניים ועד לאמצע המרחק בין האוזניים. השתמשו במקלון צמר סטרילי כדי להפריד בעדינות את העור ולחשוף את הגולגולת. ודאו שניתן לראות הן את ה-bregma והן את ה-lambda, ולאחר מכן השליכו בזהירות את להב הסקלפל למכל הייעודי לפסולת חדה.
- השתמשו בפינצטה בעלת חריצים כדי לחבר את מקדח הסטרילי למקדח. הדקו את המקדח לזרוע הסטריאוטקסתית ומקמו את המקדח מעל מרכז הברגמה (bregma), כך שרק יגע בגולגולת. אפסו את מיקום ציר ה-Z בסטריאוטקס.
- לביצוע מדד בקרת איכות להצבה נכונה של הראש:
- לאחר איפוס ב-bregma, העבירו את מקדח הקידוח ל-lambda, ושוב העבירו את מיקום ציר Z עד למגע קל עם פני הגולגולת. רשמו את מיקום ציר Z ב-lambda.
- העלה את מקדח הקידוח חזרה למעלה, ולאחר מכן הזז אותו ב-2.1- מ"מ במיקום Y, מה שאמור להיות בערך במחצית הדרך בין ה-bregma ל-lambda. הזז את מיקום X ב-1.5- מ"מ וב-1.5+ מ"מ לכל צד, ושוב רשום את מיקום Z בשני המיקומים ברגע המגע הראשוני עם הגולגולת.
- ודאו שכל מיקום Z שתועד הוא <0.2 ממ'. התאימו לפי הצורך.
- אפס שוב את הקואורדינטות בברגמה (bregma), ולאחר מכן העבר את זרוע הסטריאוטקסיס לקואורדינטות (X,Y) הרצויות.
הערה: אטלסים של קואורדינטות סטראאוטקסיות בעכברים שפורסמו משתמשים לעיתים קרובות בעכברי ייחוס במשקל תקין של בוגרים צעירים (~28 גרם). עכברים גדולים או קטנים יותר עשויים שלא להתאים באופן מושלם לקואורדינטות ייחוס אלו. מומלץ לבצע הזרקות פיילוט עם צבע כדי לוודא את דיוק הקואורדינטות לפני מתן החלבון לצורכי הניסוי. כדי להתאים את הקואורדינטות, ניתן לשקול כנקודת מוצא שימוש ביחס תיקון של Bregma-Lambda: מכפילים את המרחק שנמדד במילימטרים מה-bregma ל-lambda בעכבר בקואורדינטה המומלצת באטלס הייחוס, ולאחר מכן מחלקים את התוצאה במרחק ה-bregma-lambda המופיע באטלס הייחוס. - הפעילו את המקדח והנמיקו לאט את הזרוע בציר Z עד ליצירת מגע עם הגולגולת. קדחו בזהירות דרך הגולגולת, תוך הקפדה לא לבוא במגע עם רקמת המוח שמתחתיה ולא לפגוע בה. לאחר קידוח תקין של החור, פני השטח של המוח ייראו מבריקים ולחים.
הערה: קידוח לסירוגין ומהירות קידוח נמוכה יותר (1,000 סל"ד) יסייעו להפחית את הסיכון להתחממות כתוצאה מחיכוך מרובה, ומריחה של תמיסת סלין סטרילית במהלך הקידוח או אחריו תפחית את התזוהרות (aerosolization) של אבקת העצם. שימוש בציוד מגן אישי (מסכת פנים, הגנה על העיניים) חשוב למניעת סיכונים עבור הנסיין. - חזור על שלב 3.12 לפי הצורך אם מבוצעות הזרקות במספר אתרים.
- הסר את המקדח מזרוע הסטריאוטקס. אם מבצעים יותר מניתוח אחד, השתמש בפינצטה משוננת סטרילית כדי להסיר את מקדח הקידוח מהמקדח ולהניחו בתוך סטריליזטור חרוצים. לאחר 10 שניות, הסר את מקדח הקידוח מהחרוצים והנח אותו בשטח הסטרילי שעל מגבת הניתוח.
- טבל מקלון סטרילי בתמיסת סלין 0.9% והשתמש בו כדי להרטיב את הגולגולת החשופה ולניגוב אבק שנוצר מהקידוח. בדוק את חומר הסיכוך בעינו של בעל החיים ומריא כמות נוספת במידת הצורך.
4. הזרקה של חלבון העניין והתאוששות כירורגית
- הדק את המזרק הטעון לזרוע הסטראאוטקסית. בצע איפוס מחדש ב-bregma וכוונן לקואורדינטות (X,Y) הרצויות. הורד את קצה המזרק דרך החור שנקדח בגולגולת עד שיהיה בדיוק על פני המוח, מתחת לגולגולת. אפס את מישור Z.
- החדר באיטיות רבה את קצה המזרק עד למעבר קל של קואורדינטת Z הרצויה (תוספת של כ-0.2- mm) ולאחר מכן העלה אותו חזרה לקואורדינטה הנכונה.
- הזרק לאט את החלבון הרצוי, בקצב שאינו עולה על 500 nL/min. רשום את זמן ההזרקה.
הערה: שקול בזהירות את נפחי ההזרקה כדי להשיג מיקוד מרחבי רצוי תוך הימנעות מפגיעה ונזק לרקמה. יש לבצע בדיקות אמפיריות כדי לאפטם את הנפח ואת קצב ההגשה עבור כל אזור עניין (ראה Discussion לפרטים נוספים). - כדי למנוע זרימה חוזרת של החומר המוזרק, השאר את המזרק במקומו למשך 5–10 דקות נוספות לאחר סיום ההזרקה.
- העלה לאט את המזרק חזרה אל מחוץ למוח, במשך 1–2 דקות.
- חזור על שלבים 4.1–4.5 אם מבוצעות מספר הזרקות.
- הסר את המזרק מהסטראאוטקס עם הסיום.
- השתמש במקלון צמר סטרילי טבול בתמיסת סליין כדי להחזיר לחות לאתר החתך הניתוחי. מרח bupivacaine או אלחוש מקומי מועדף אחר באופן טופיקלי על העור.
- השתמש בפינצטה סטרילית כדי לסגור את אתר החתך ומרח דבק רקמות (או שיטות מועדפות אחרות, כגון תפרים או סיכות לפצע) כדי לאטום את הפצע.
הערה: היזהר שלא להגיע עם דבק הרקמות לאזור העיניים של החיה או לכל חלק בעור מלבד החתך עצמו. ניתן להשתמש בטיפ פיפטה סטרילי ובפיפטה כדי למרוח את דבק הרקמות באופן מבוקר יותר מאשר באמצעות האפליקטורים המסופקים על ידי היצרן. - שחרר את מוטות האוזניים ואת תומך האף, והנח את החיה בכלוב נקי ומחומם להחלמה. רשום את הזמן שבו החיה הוצאה מהרדמת isoflurane.
- עקוב אחר החיה ורשום את הזמן שבו נצפתה החיה עומדת לראשונה. ברגע שהחיה ניידת לחלוטין למשך 30 min לפחות, החזר אותה לכלוב בית נקי עם טיפול תומך, כגון הידרוג'ל ומזון טחון שהוחזר ללחות.
הערה: אלא אם כן נאספת רקמה באופן אקוטי (בתוך 24 h) מהחיה שהחלימה, יש לשקול אותה ולעקוב אחריה פעם ביום במהלך השבוע הראשון לאחר הניתוח כדי להעריך תגובות לוואי, ריפוי תקין של הפצע ולאשר החלמה בריאה. יש לתת משככי כאבים פוסט-אופרטיביים בהתאם לפרוטוקולים שנבחנו ואושרו על ידי IACUC; מינון של 4 mg/kg של meloxicam ניתן תת-עורית כל 24 h במהלך 3 הימים הראשונים לאחר הניתוח. את כל התצפיות יש לרשום ביומן מעבדה. אם נצפתה חיה המפגינה התנהגות של חולי, כגון ירידה בניידות, ירידה במשקל של >15% ממשקל טרום-הניתוח, או סימנים אחרים לבריאות לקויה, יש ליצור קשר עם וטרינר להתייעצות, או להקריב את החיה באופן הומני ולהסירה מהמחקר.
5. הכנת רקמה להליך האימונוהיסטוכימי
- אסף את החומרים הבאים: 1x PBS, פינצטה, מספריים קטנים, מזרק של 30 mL או משאבת פרפוזיה, מחט פרפר (butterfly) בכיול 26-gauge, שני מבחנות קוניות של 15 mL, 4% פאראפורמאלדהיד (PFA) ב-PBS, שלוש כלי שקילה קטנים (לשטיפת ה-PFA מהרקמה), 30% סוכרוז ב-PBS.
הערה: PFA הוא חומר מסרטן המפליט אדים רעילים הדורשים טיפול וסילוק מיוחדים. את כל שלבי ההכנה, השימוש והסילוק של PFA יש לבצע במנדף כימיים או בארון בטיחות ביולוגית. את כל פסולת ה-PFA, כולל פסולת נוזלית וכל חומר מוצק שהיה במגע עם PFA (כלומר, טיפי פפיטה, מבחנות, כלי שקילה וכו'), יש להניח במכלי פסולת מסוכנת בהתאם להנחיות המוסד בו מבוצעת העבודה. - פעל לפי הנחיות המוסד לנהלי קטילה (euthanasia). לאחר אישור הקטילה, העבר את החיה למעלה ממגש או דלי ופתח את חלל הבטן של החיה באמצעות פינצטה ומספריים כדי לחשוף את הלב.
- בצע פרפוזיה טרנס-קרדיאלית (transcardially) לחיה עם 1x PBS קר באמצעות משאבה או באופן ידני באמצעות מזרק של 30 mL.
הערה: הזמן שבין הקטילה לפרפוזיה צריך להיות קצר ככל האפשר כדי למנוע קרישה, ולכן יש לבצע את הפעולה אחת אחת אם אוספים רקמה ממספר עכברים. - הוצא את המוח השלם מהגולגולת והעבר אותו למבחנה קונית של 15 mL המכילה תמיסת 4% PFA למשך לא יותר מ-2 שעות. רשום את הזמן שבו הונח כל מוח ב-PFA כדי להבטיח שלא תבצע קיבוע יתר (overfixation) של הרקמה.
הערה: יש לבחון אמפירית את האופטימיזציה של קיבוע הרקמה עבור מטרות העניין. לדוגמה, אינטראקציות של C1q עם קומפלקסים נוירונליים של ריבונוקלאופרוטאין רגישים לקיבוע יתר8. אנא עיין בפרק הDiscussion לפרטים נוספים על בחירת שיטת קיבוע מתאימה. - לאחר משך זמן קיבוע מתאים של הרקמה, בצע שלושה שלבים של שטיפה ב-PBS כדי להסיר שאריות PFA מהרקמה.
- העבר את המוח למבחנה קונית של 15 mL המכילה תמיסת 30% סוכרוז ב-PBS, ואחסן בטמפרטורה של 4 °C עד שהמוח שוקע לתחתית. בממוצע, פעולה זו צריכה לקחת 1–3 ימים.
- להטמעה (embedding) של מוחות מקובעים, אסוף את החומרים הבאים: 30% סוכרוז ב-PBS, מדיום הטמעה להקפאה, תבניות הקפאה חד-פעמיות בגודל מתאים (כגון 22 mm x 22 mm), להב תער, פינצטה, פפיטה סרולוגית וטיפים.
- ערבב מדיום הטמעה להקפאה ותמיסת 30% סוכרוז ביחס של 1:1 כדי ליצור את תמיסת ההטמעה. בשימוש בתבניות של 22 mm x 22 mm, נדרשים כ-5 mL של תמיסת הטמעה לכל תבנית. בצע וורטקס (vortex) היטב כדי לאחד את הצמיגויות השונות.
- עבור חתכים סגיטליים של המוח, השתמש בלהב תער כדי לחתוך את המוח לאורך קו האמצע (איור 2A). סמן כל תבנית רקמה עם פרטי הדגימה, כולל ההמיספære. ניתן להניח המיספירות בתבניות נפרדות או להרכיב אותן יחד, בהתאם להעדפה, כאשר קו האמצע פונה לתחתית התבנית (איור 2B).
- הוסף נפח מתאים של תמיסת הטמעה כדי להקיף ולהטביע לחלוטין את רקמת המוח. הנח לתבניות המלאות לעמוד בטמפרטורת החדר למשך שעה אחת.
הערה: אין בעיה אם תמיסת ההטמעה עדיין מלאה בבועות עקב הוורטקס. תקופת הדגירה של שעה אחת מאפשרת לבועות להתפוגג. - הכן קרח יבש והנח מדף מתכת שטוח או פלטה מעליו כדי ליצור משטח שטוח להקפאה.
- העבר בעדינות כל תבנית מלאה כך שתנוח בצורה שטוחה ככל האפשר על קרח היבש. השתמש בפינצטה לאחר העברת התבניות אך לפני תחילת ההקפאה כדי לוודא שהמוחות עדיין נמצאים במיקומם. ברגע שתמיסת ההטמעה הופכת לאטומה לחלוטין, היא קפאה למוצק, וניתן להעביר את הרקמות המוטמעות לטמפרטורה של -80 °C עד לביצוע אימונוהיסטוכימיה (איור 2C).
- השתמש בקריוסטט (טמפרטורת תא: -20 עד -25 °C, טמפרטורת ראש: -15 עד -18 °C) כדי לאסוף חתכים סגיטליים של 15–40 µm על גבי סליידים טעונים, תוך הקפדה על מרווח מספיק המאפשר יישום של מחסום עט PAP. ניתן להניח שלושה חתכים סגיטליים במרווחים נכונים על סלייד בודד.
הערה: אם מדמים חלבון רגיש, או חלבון שרגישותו אינה ידועה, אסוף רק את החתכים הדרושים לניסוי האימונוהיסטוכימיה, ובצע אותו באותו היום. ניתן לשמור רקמה מוטמעה ולהקפיאה מחדש ב-80°C לניסויים עתידיים. לחלופין, ניתן לאחסן סליידים עם רקמה חתוכה בקופסאות סליידים ב-80°C-.
6. ביצוע אימונוהיסטוכימיה עבור החלבון המוזרק
- אסוף חומרים עבור אימונוהיסטוכימיה: 1x TBS, עט PAP, saponin, albumin סרום בקר (BSA), נוגדנים ראשוניים רלוונטיים, נוגדנים שניוניים, מחמד autofluorescence מבוסס Sudan Black B, אתנול 70%, מדיום עיגון עם DAPI, לוחות כיסוי, לק ציפורניים.
הערה: תמיסות לכיבוי autofluorescence הזמינות מסחרית מכילות לעיתים קרובות dimethylformamide (DMF), הדורש שימוש ופסולה זהירים. אין לטפל בחומר ללא כפפות, ויש לאסוף כל תמיסה משומשת למכל פסולת אורגנית בהתאם לנהלי המוסד שבו מבוצעת העבודה. - השתמש בפיפטת העברה כדי להחיל 1x TBS על נתחי הרקמה שעל השקופית לשטיפה של 10 דקות.
- שאב את שטיפת ה-1x TBS, ולאחר מכן השתמש בעט PAP כדי להחיל מחסום הידרופובי מסביב לכל נתח רקמה.
הערה: ביצוע פעולה זו לאחר השטיפה הראשונה ב-1x TBS אמור לסייע בהסרת עודפי תמיסת הטמיעה שעלולים להידבק לשקופיות ולהפחית את יעילות המחסום. השתמש במטלית ניגוב להסרת עודפי תמיסה לפני הנחת המחסום. עם זאת, הקפד שלא לאפשר לרקמה שהורטבה מחדש להתייבש. - חזור על שטיפת ה-1x TBS למשך 10 דקות פעמיים, לסך הכל 3 שטיפות.
- הכן בופר חדירה (permeabilization buffer): הוסף 0.1% saponin ל-1x TBS. השתמש בבופר תוך שבועיים מההכנה. הגש כ-100 µL לכל נתח והדגס ל-10 דקות בטמפרטורת החדר.
- הכן בופר חסימה (blocking buffer): הוסף 0.1% saponin ו-1% BSA ל-1x TBS. בופר חסימה ישמש בנוסף עבור התמיסות הראשוניות והשניוניות, לכן הכן כמות נוספת ואחסן ב-4 °C. השתמש בבופר תוך שבועיים מההכנה. שאב את בופר החדירה והגש כ-100 µL של בופר חסימה לכל נתח. הדגס בטמפרטורת החדר למשך שעה אחת.
- הכן תמיסה ראשונית: הוסף נוגדנים ראשוניים לבופר החסימה. התחל בריכוז של 1:500 של נוגדן ראשוני, והתאם זאת בהתאם לתוצאות. שאב את בופר החסימה והגש כ-100 µL של תמיסה ראשונית לכל נתח.
הערה: כדי להגביר את אות הפלואורסצנציה האנדוגנית של חלבון מטרה, ניתן לבצע הגברה באמצעות נוגדן ראשוני נגד התג (למשל, נוגדן anti-GFP). - אחסן את השקופיות בתמיסה הראשונית למשך לילה ב-4 °C.
הערה: כדי למנוע התאיידות במהלך הלילה, ודא שיש כמות נדיבה של תמיסה ראשונית על כל נתח והוסף לחות נוספת לאזור אחסון השקופיות. - שטוף את התמיסה הראשונית על ידי שטיפה של שלוש פעמים ב-1x TBS למשך 10 דקות בטמפרטורת החדר.
- הכן תמיסה שניונית: הוסף נוגדנים שניוניים לתמיסת בופר החסימה. התחל בריכוז של 1:200 של נוגדן שניוני, והתאם לפי הצורך. הגש כ-100 µL של תמיסה לכל נתח רקמה, והדגס למשך שעה אחת בטמפרטורת החדר, תחת כיסוי להגנה מאור.
הערה: בשלב זה, השקופיות חייבות להישאר מוגנות מאור. - הסר את התמיסה השניונית על ידי שטיפה ב-1x TBS למשך 10 דקות בטמפרטורת החדר.
- הכן טרי תמיסה לכיבוי autofluorescence לפי הוראות היצרן. הכן תמיסת עבודה 1x על ידי דילול תמיסת כיבוי 20x בתוך אתנול בדרג מולקולרי (molecular grade) בריכוז 70%.
- שקופית אחת בכל פעם, שאב את ה-1x TBS והגש תמיסות כיבוי 1x. סובב בעדינות את השקופית למשך 20–30 שניות, כדי לאפשר לתמיסה לנוע סביב נתחי הרקמה.
- שפוך את תמיסת הכיבוי למכל פסולת, ולאחר מכן הגש TBS באמצעות פיפטת העברה לכל נתח, שפוך את ה-TBS למכל הפסולת, וחזור במהירות על שטיפות ה-TBS עד שנוזל ה-TBS יוצא נקי (בדרך כלל 2–3 פעמים מספיקות).
- הגש 1x TBS לנתח כדי למנוע ממנו להתייבש לפני חזרה על שלבי תמיסות הכיבוי עבור כל שקופית.
- שקופית אחת בכל פעם, שאב את ה-TBS ביסודיות, ולאחר מכן הגש לפחות טיפה אחת של מדיום עיגון עם DAPI לכל נתח רקמה. הנח לוח כיסוי על השקופית ואטום את קצוות לוח הכיסוי בלק ציפורניים כדי למנוע התאיידות של מדיום העיגון או תזוזה של לוח הכיסוי. חזור על הפעולה עם כל השקופיות.
- שמור את השקופיות ב-20 °C- לאחסון לטווח ארוך אם אינך מבצע הדמיה באופן מיידי.
תוצאות
C1q הוא חלבון גדול (~450 kD) המבוטא ברמה גבוהה בכל רחבי הגוף, בעל תפקידים מוגדרים היטב במערכת החיסון המולדת כחבר מפתח במסלול המשלים הקלאסי. עם זאת, תפקידיהם התפקודיים של C1q במוח עדיין נמצאים תחת מחקר. C1q במוח מיוצר ומשוחרר בעיקר על ידי מיקרוגליה, אוכלוסיית תאי החיסון התושבים של המוח9. תפקידו של C1q בתהליכים כגון הסרה סינפטית במהלך התפתחות תקינה של המוח, למידה וזיכרון, ובהקשרי מחלה, הוכח שוב ושוב10,11,12,13,14. כמו כן, נצפתה הצטברות של C1q בתוך מבנים עצביים או בסמיכות מיידית אליהם עם התגבשות גיל המוח, הן במכרסמים והן בפרימטים שאינם בני אדם9,15,16. המעבדה שלנו מעוניינת בהשלכות התפקודיות של הצטברות C1q במוח במהלך ההזדקנות. מחקר זה גילה כי C1q מקיימת אינטראקציה עם חלבונים תוך-תאיים עצביים במכרסמים בוגרים ומזדקנים, כולל חלבונים קושרי RNA8. מכיוון שהוכח בעבר שתאי T מסוגלים להפנים (internalize) C1q שמקורו מסוגי תאים אחרים17, בדקנו האם גם נוירונים מסוגלים להפנים C1q חיצוני in vivo.
במחקר זה בוצעו תחילה הזרקות חד-צדדיות תוך-חדריות מוחיות (ICV) של 2 µL מחלבון C1q לעכברים זכרים בני 3 חודשים. מכיוון ש-C1q מבוטא במוח של בוגרים מסוג wild-type, השתמשנו בשתי גישות: ראשית, חלבון C1q הוזרק לעכבר C1q -/- (knockout), ושנית, ה-C1q סומן פלואורסצנטית באמצעות צימוד 594-maleimide כדי לאפשר הבחנה בין חלבון C1q טבעי לבין חלבון C1q חיצוני בבעל חיים מסוג C1q +/+ (wild-type). החלבון ניתן בריכוז של 1 mg/mL, תלוי בתמיסת באפר של 10 mM HEPES, 300 mM NaCl, pH 7.2. הקואורדינטות הסטריאוטקסיות הבאות שימשו להזרקה ICV להמיספירה השמאלית: X = +1.0 mm, Y = -0.4 mm, Z = -2.5 mm, והנפח הוזרק בקצב של 500 nL/min. כדי לצמצם זרימה חוזרת, המחט מזכוכית מומשכת ששימשה להזרקה הושארה במקומה למשך 5 min לאחר סיום ההזרקה ולפני הסרתה. רקמות נאספו שעה אחת לאחר ההזרקה ועובדו לניתוח אימונוהיסטוכימי בחתכים סגיטליים. הזרקה מוצלחת צריכה להוביל לפלואורסצנציה מקומית באזור שהוגדר סטריאוטקסיות.
ראשית, בעכברים C1q -/-, ביצענו דימוג של חתכים סגיטליים בעובי 30 µm של ההמיספרה השמאלית (איור 3A) והימנית (איור 3B) לאחר השלמת פרוצדורת האימונוהיסטוכימיה (שלבים 6.1–6.17). נעשה שימוש בנוגדן anti-NeuN להדמיית גופי תאי עצב (ציאן), ובנוגדן anti-C1q (אדום) להדמיית C1q לא-מתויג שהוזרק שעה אחת לפני כן לחדר המ ventricle השמאלי. ניתן להבחין בכמות שופעת של C1q בהמיספרה השמאלית בתוך הפארנכימה הפרי-ונטריקולרית, ובלוקולוקליזציה גבוהה בין גופי תאי עצב לבין C1q באזור CA3 של ההיפוקמפוס (איור 3A), בדומה למה שנצפה בעכבר מסוג wild-type עם ביטוי אנדוגני של C1q. כפי שצפוי, C1q המוזרק אינו נראה סביב החדרים (או בכל מקום אחר בפארנכימה) בהמיספרה הקונטרלטרלית שעה לאחר ההזרקה (איור 3B). לאחר מכן, בוצע דימוג של מוחות של עכברי wild-type C1q +/+ (C57BL/6J) שהוזרק להם C1q-594 בשיטת ICV. כאן אושש כי ניתן להדמות C1q-594 (מגנטה) בחתכים סגיטליים של 30 µm באמצעות כיבוי אוטופלורסצנציה בלבד וכיסוי עם DAPI (כחול) (שלבים 6.12–6.17). בהמיספרה השמאלית (המוזרקת), ניתן להבחין ב-C1q מוזרק המתויג פלואורסצנטית (מגנטה) באותה התפלגות פרי-ונטריקולרית (איור 3C).
על מנת לאשר קולוקליזציה נוירונלית, בוצע ניסוי משני עם שני זכרים בני חודשיים מסוג C1q -/-. בהמיספרה אחת, קיבלו העכברים הזרקה ICV של 2 µL של C1q-594, ובהמיספרה השנייה קיבלו העכברים 2 µL של C1q-594 שעבר אינאקטיבציה תרמית (HI). האינאקטיבציה התרמית בוצעה לאחר צימוד 594-maleimide, כאשר מחצית מהחלבון שהוכן הוכנסה לבלוק חימום שהוגדר ל-56 °C למשך 30 min. הוכח בעבר כי אינאקטיבציה תרמית משנה את מבנה החלבון הטבעי של C1q ומשבשת את האקטיבציה18. C1q טבעי ונורמלי בריכוז של 200 µg/mL במסנן תמיסה (50 mM HEPES, 150 mM NaCl, pH 7.5) הוא מסיס בתמיסה ואינו יוצר אגרגטים נראים תחת מיקרוסקופיה בשדה בהיר (איור 4A). לעומת זאת, כאשר אותה הכנה של חלבון חוממה, נצפו אגרגטים נראים תחת שדה בהיר (איור 4B), דבר המצביע על שינוי בקונפורמציה של החלבון. לאחר מכן, נבדק האם הזרקה של HI-C1q in vivo תשנה את הספיגה הנוירונלית של C1q. מוחות נאספו שעה אחת לאחר ההזרקה, וכל המיספרה עובדה באופן זהה כפי שמתואר בפרוטוקול לעיל. בחתכים סגיטליים בעובי 20 µm, בוצע אימונוהיסטוכימיה לזיהוי נוירונים. תמונות בהגדלה של 40x צולמו עם הגדרות זהות של hippocampal CA3 כדי ללכוד נוירונים NeuN+ (בציאן) ו-C1q-594 (באדום) (איור 5A,B). בהמיספרה שהוזרק בה C1q-594 נורמלי, נצפתה סימונ C1q חזק (איור 5A), בעוד שבמיספרות שהוזרק בהן HI-C1q-594, לא נצפה C1q-594 ב-CA3, אף שניתן היה להבחין בחלבון הפלואורסצנטי נאסף מסביב לקצוות המערכות (איור 4C), דבר העולה בקנה אחד עם שינוי בתפקוד הנורמלי של חלבון C1q בספיגה נוירונלית. כימות של תאי NeuN+ על ידי כימות ידני על ידי חוקר מסומך (blinded) ב-8 שדות ראייה בהגדלה של 40x לא העלה שינויים בצפיפות הנוירונים ב-CA3 בין ההמיספרות (איור 5D), עם זאת, אחוז הנוירונים שהיו C1q+ היה נמוך באופן מובהק בהמיספרות שהוזרק בהן HI-C1q-594 (איור 5C) לפי t-test דו-זנבי (p = 0.026, n = 2 בעלי חיים, 2 תמונות של כל המיספרה לכל בעל חיים שנותחו).
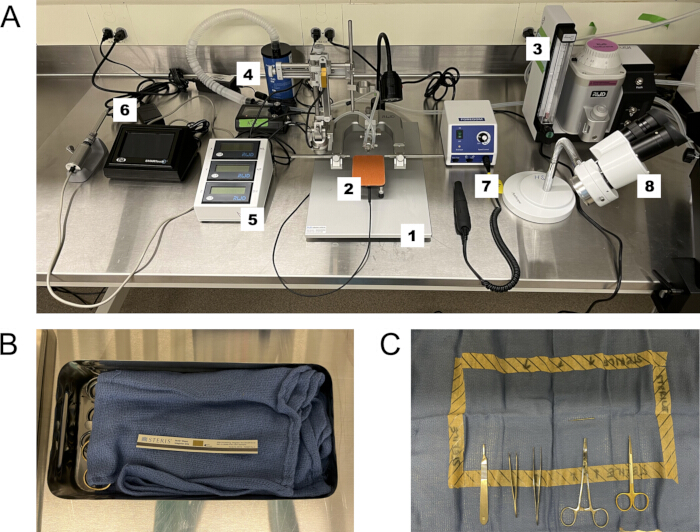
איור 1: מערך כירורגי והכנת שטח סטרילי לניתוח. (A) ציוד כירורגי: 1. סטריאוטקס, 2. מחמם למכרסמים, 3. מאייד איזופלורן, 4. מיכל לפינוי איזופלורן, 5. זרוע סטריאוטקס דיגיטלית, 6. מיקרו-מזרק, 7. מקדח, 8. מיקרוסקופ סטריאוסקופי. (B) כלי עיקור באוטוקלאב ומגבת כירורגית לשטח סטרילי עם פס אינדיקטור לאדים לאישור הסטריליות. (C) כלים שעברו עיקור באוטוקלאב מונחים בזהירות כאשר הקצוות פונים פנימה אל השטח הסטרילי שהגדירו על המגבת הכירורגית שעברה עיקור. הידיות נשארות מחוץ למרכז הסטרילי, וקצוות הכלים יבואו במגע עם החיה רק לאחר חיטוי ב-betadine וב-70% ethanol. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
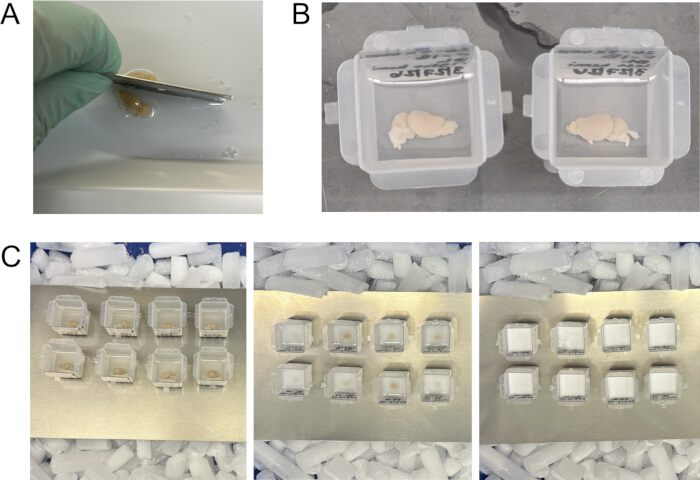
איור 2: עיבוד והקפאת המוח לצורך חיתוך סגיטלי. (A) השתמשו בלהב תער כדי לחתוך את המוח לאורכו של קו האמצע, ולאחר מכן הניחו כל המיספרה כאשר צד קו האמצע פונה כלפי מטה בתבנית הקפאה. (B) מלאו את התבניות בתערובת של 50:50 של מדיום הטמעה להקפאה ו-30% סוכרוז ב-PBS. (C) הקפיאו את המוחות בתבניות על קרח יבש (שמאל). המוחות יהפכו לאטומים כאשר יהיו קפואים לחלוטין (ימין). אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
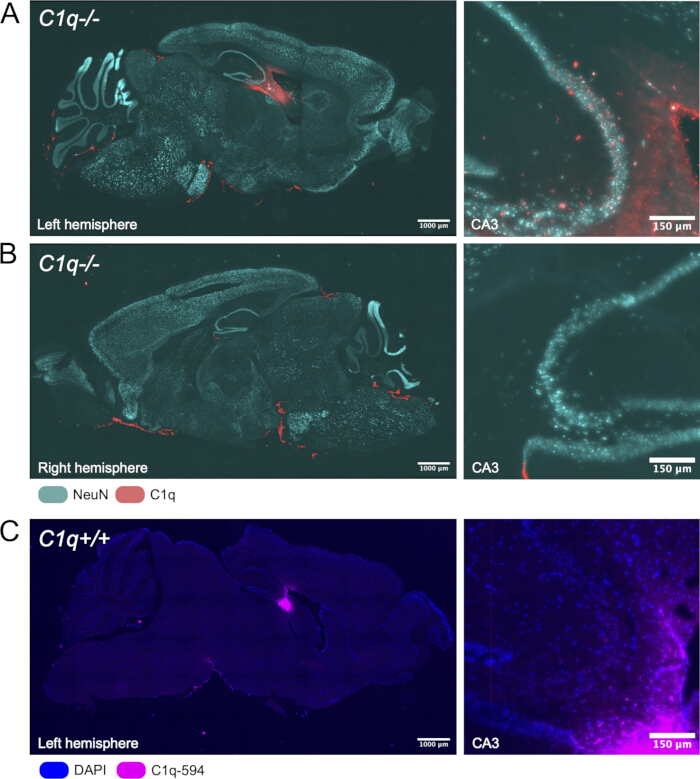
איור 3: תוצאות מייצגות של מתן תוך-חדרי מוחי (ICV) של חלבון C1q שעה אחת לאחר ההזרקה. (A) חיתוך סגיטלי של חלבון C1q המוזרק (אדום) וגופי תאי עצב NeuN+ (ציאן) בהמיספרה המוזרקת, ובתמונה מוגדלת אזור CA3 של ההיפוקמפוס הסמוך לחדר. (B) חיתוך סגיטלי של ההמיספרה הנגדית להזרקה באותו בעל חיים, עם חלבון C1q המוזרק (אדום) וגופי תאי עצב NeuN+ (ציאן), ובתמונה מוגדלת אזור CA3. (C) חיתוך סגיטלי של בעל חיים מסוג wild-type שהוזרק ICV עם C1q המסומן פלואורסצנטית באמצעות צימוד 594-maleimide (מגנטה), ללא הגברה אימונוהיסטוכימית, אך עם כיסוי של DAPI (כחול), ובתמונה מוגדלת אזור CA3. סרגלי קנה מידה בתמונות משמאל = 1000 µm, סרגלי קנה מידה בתמונות מימין = 150 µm. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
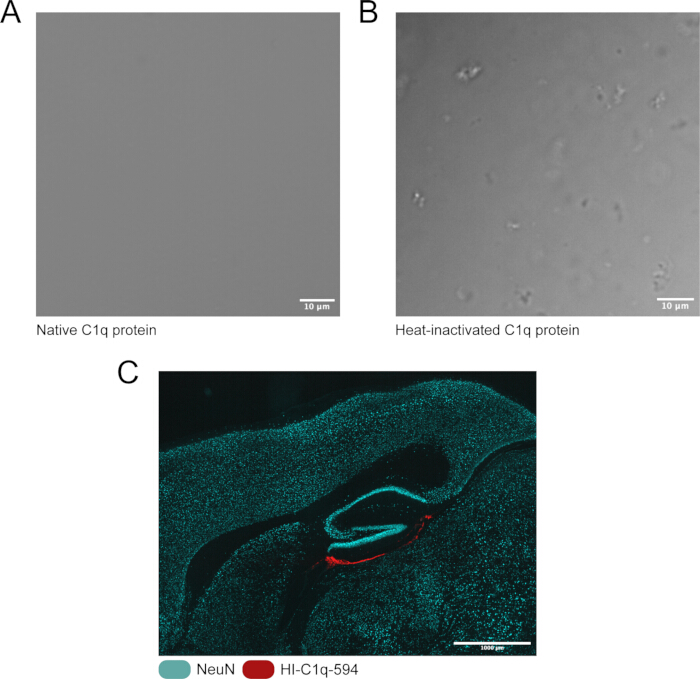
איור 4: אינאקטיבציה תרמית של חלבון C1q. (A) חלבון C1q טבעי, תלוי בבופר (50 mM HEPES, 150 mM NaCl, pH 7.5) בריכוז של 200 μg/mL, שצולם במיקרוסקופיית שדה בהיר. (B) אותו מקור של חלבון C1q, תלוי באותו בופר ובאותו ריכוז, אך שעבר טיפול תרמי ב-56 °C למשך 30 min לפני הצילום במיקרוסקופיית שדה בהיר. (C) לוקליזציה של HI-C1q-594 שעבר אינאקטיבציה תרמית (אדום) ותאי +NeuN (ציאן) בחתך סגיטלי שעה אחת לאחר הזרקה תוך-וונטריקולרית (ICV). סרגל קנה מידה עליון = 10 µm, סרגל קנה מידה תחתון = 1000 µm. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
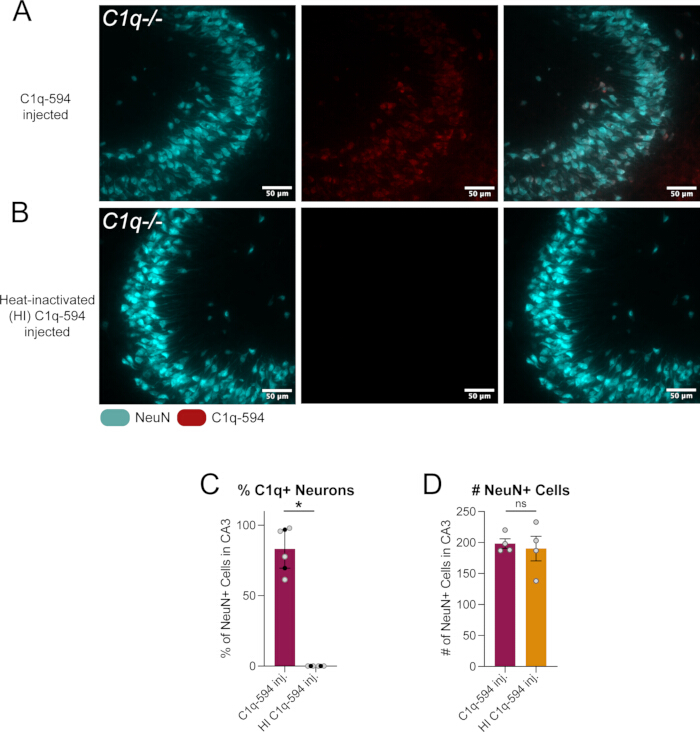
איור 5: כימות של ספיגת חלבון C1q תקין לעומת C1q שהשתבת בחימום לתוך נוירונים בהיפוקמפוס. (A) חיתוך סגיטלי של אזור CA3 בהיפוקמפוס סמוך לחדר, שבו הוזרק C1q-594 שעה אחת לפני כן. גופי תאי נוירונים NeuN+ (ציאן), C1q-594 (אדום), והחפפה של השניים. (B) חיתוך סגיטלי של אזור CA3 בהיפוקמפוס סמוך לחדר, שבו הוזרק (HI)-C1q-594 שהשבת בחימום שעה אחת לפני כן. גופי תאי נוירונים NeuN+ (ציאן), C1q-594 (אדום), והחפפה של השניים. (C) כימות של אחוז התאים NeuN+ שהם C1q-594+ בשדה ראייה של 40x, מבחן t-test דו-זנבי. (D) כימות של מספר התאים NeuN+ בשדה ראייה של 40x, מבחן t-test דו-זנבי. סרגלי קנה מידה = 50 µm. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
| סימון חלבונים | נוגדן | |
| ויזואליזציה | ישיר, שאינו תלוי בנוגדן | עשוי להפגין תגובתיות צולבת עם חלבונים אחרים, בהתאם לזמינות האנטיגן |
| הכנה | דרושה הכנה ותיקוף ממושכים וטכניים יותר של החלבון הנחקר, שכן סימון עלול לשנות את מבנה החלבון ואת תפקודו. בנצולת התגובה עשויה להיות נמוכה, דבר הדורש כמויות גדולות של חלבון פלט (input protein). | ללא הכנה, נוגדנים רבים זמינים מסחרית וכבר עברו תיקוף |
| גמישות ניסיונית | מעקב בזמן אמת אפשרי במידה ונדרש | דורש קיבוע |
| רגישות | רגישות מוגבלת עקב סטוכיומטריה | מאפשר הגברה |
טבלה 1: יתרונות וחסרונות של סימון חלבונים נגדגילוי נוגדנים.
דיון
ראיות חדשות תומכות בתפקיד קריטי של מיקרוגליה בהומאוסטזיס של מערכת העצבים המרכזית (CNS), המתווך על ידי רפרטואר מורכב יותר ויותר של גורמים מופרשים5. היכולת לספק גורמים המופרשים ממיקרוגליה באופן מרחבי-זמני מוגדר מהווה כלי בעל ערך להבנת התקשורת הנוירו-אימונית המורכבת תחת מגוון תנאים סביבתיים וגנטיים.
ניתן להתאים שיטה זו בקלות למענה על מגוון שאלות ביולוגיות. בעוד ששיטה זו שימשה בעבר להבנה טובה יותר של תפקידי C1q, חלבון גדול מאוד, בתפקוד נוירונלי8, ניתן להחיל אותה גם כדי לחקור את תפקידיהם של חלבונים גדולים אחרים, כמו גם חלבונים קטנים כגון ציטוקינים וכימוקינים. בעוד שהתפקידים החיסוניים של ציטוקינים וכימוקינים מובנים היטב למדי, in vivo, גורמים אלה משתחררים לעיתים קרובות יחד, בתגובה לגורם מאמץ, ובאופן נרחב. יתרה מכך, תפקידיהם הלא-חיסוניים/הלא-קנוניים של גורמי חיסון שונים, שלעיתים קרובים להומיאוסטזה, הופכים ברורים יותר ויותר. שימוש בשיטה זו יאפשר חקירה של גורמים ספציפיים באופן מבודד, כמו גם באזורי מוח ספציפיים, ואפילו את תפקידיהם של גורמים אלו בהומיאוסטזה. יישום מועיל נוסף של פרוטוקול זה יהיה מתן חלבונים רלוונטיים בקווי עכברים טרנסגניים, כגון בקווי knockout או במודלים של מצבי מחלה ספציפיים. היכולת לשלוט במיקום המדויק ובכמות של חלבון רלוונטי בעכבר ללא ביטוי אנדוגני של חלבון זה, יכולה לשמש כדי לקבוע אם מתן מקומי ואקוטי של החלבון משרה השפעה כלשהי, כגון שינוי התנהגותי. לחלופין, ניתן להזריק לקו טרנסגני שחסר רצפטור ספציפי או חלבון איתות שמעריכים כי הם חשובים לתפקוד של הגורם המוזרק.
בנוסף, ניתן לבצע מתן תוך-גולגולתי של גורמים המופקים ממיקרוגליה במקביל להזרקה של גורמים אחרים, כדי לשפר את ההבנה המכניסטית של תפקוד חלבון מסוים. לדוגמה, כדי לקבוע כיצד C1q, חלבון המופק ממיקרוגליה, חודר לנוירונים ומתממשק עם מערכת התרגום שלהם, השתמשנו בעבר בטכניקה זו למתן משולב של מעכב אנדוציטוזה 30 דקות לפני הזרקת C1q. הדבר אפשר לנו לקבוע כי C1q יכול להיכנס לנוירונים via אנדוציטוזה, שכן יישום משולב עם המעכב הוביל להפחתה משמעותית של C1q בתוך הנוירונים8. ניסויים דומים ניתן לבצע באמצעות מתן של נוגדי חסימה או אפילו גורמים אחרים המשערים קשירה תחרותית. ניתן למשוך את ניסויי המתן המשולב הללו גם באופן זמני על ידי הארכה או קיצור של מרווחי ההזרקה, למשל, הזרקת גורם אחד 30 דקות לפני השני, או גורם אחד 5 דקות לעומת שעה אחת לפני כן.
יש לשקול מספר גורמים בעת תכנון ניסויים המשתמשים במתודולוגיה זו, החל מהאסטרטגיה לגילוי החלבון הנחקר. כאן הודגמו שתי גישות מייצגות: סימון פלואורסצנטי ישיר של החלבון (איור 3C) וגילוי אימונוהיסטוכימי באמצעות נוגדנים (איור 3A), שלכל אחת מהן יתרונות ומגבלות נפרדים (טבלה 1). גילוי מבוסס נוגדנים הוא רגיש מאוד ומאפשר הגברה של האות, אך הוא דורש קיבוע של הרקמה, מה שהופך אותו לבלתי מתאים ליישומים כגון דימוי חי של דינמיקת חלבונים. סימון פלואורסצנטי ישיר נמנע ממגבלה זו אך דורש שינוי של החלבון עצמו, דבר העלול להשפיע על תכונותיו ולכן מחייב תיקוף. ללא קשר לגישה הנבחרת, תיקוף קפדני הוא חיוני. נוגדנים מסחריים זמינים באופן נרחב אך עשויים להראות קישור לאתרים שאינם המטרה (off-target binding) או תגובת צלב, מה שהופך את בדיקת הספציפיות לקריטית. במידת האפשר, יש לאשר את ביצועי הנוגדן באמצעות בקרות מתאימות, כגון השוואת צביעה ברקמה של סוג בר (wild-type) וברקמה עם נשקיות של החלבון (protein knockout), שנותרתe תקן הזהב לתיקוף נוגדנים.
לעומת זאת, סימון פלואורסצנטי ישיר דורש הן הכנה והן תיקוף לפני השימוש הניסויי. למרות שגישה זו מאפשרת ויזואליזציה ישירה של החלבון ללא הסתמכות על נוגדנים, חיוני לוודא שהתג הפלואורסצנטי אינו משנה את מבנה החלבון, המיקום שלו, האינטראקציות שלו או תפקודו. תיקוף מתאים תלוי בחלבון, אך עשוי לכלול אישור של המשקל המולקולרי הצפוי באמצעות Western blot, אימות מיקום תאי או תת-תאי תקין, או הערכת השימור של אינטראקציות ידועות בין חלבונים באמצעות בדיקות כגון co-immunoprecipitation. בסופו של דבר, הן לזיהוי מבוסס נוגדנים והן לסימון ישיר של חלבונים ישנם יתרונות ומגבלות מובנים, ויש לקבוע את הגישה המתאימה ביותר באופן אמפירי באמצעות מחקרי פיילוט המותאמים לחלבון הנחקר ולהמלצות שפורסמו19.
כדי שמתודולוגיה זו תהיה אמינה, חשוב שהקואורדינטות הסטריאוטקסיות וריכוז החלבון המוזרק שנבחרו על ידי החוקר יעברו אופטימיזציה ותיקוף אמפיריים מראש. ניתן לבצע תיקוף של הקואורדינטות באמצעות הזרקה ראשונית (pilot) של צבע, כגון Fast Green, ולאחר מכן איסוף המוח מיד לאחר ההזרקה. פעולה זו תאפשר אישור ויזואלי של מיקום הצבע באזור העניין, וכן תעניק את ההזדמנות לדייק את הקואורדינטות לצורך השגת ההזרקה המדויקת ביותר האפשרית. המחברים ממליצים להסתמך על עבודות שפורסמו בעבר כדי לקבוע קואורדינטות סטריאוטקסיות מדויקות לאזורי העניין, או לחשב קואורדינטות לבדיקה בעכברים גדולים או קטנים בהתבסס על יחס ה-bregma-lambda, כפי שמתואר ב-פרוטוקול.
על מנת להסיק מסקנות ניסיוניות לגבי החלבון שהוזרק, ישנם מספר בקרות מפתח שיש לשקול ולכלול בניסוי שתוכנן היטב. קיימים אתגרים מובנים בחקר חלבונים המופקים ממיקרוגליה via מתן תוך-גולגולתי. אם החוקר מעוניין בתגובה לחלבון מסוים באזור ספציפי במוח, הניתוח עצמו יהיה דלקתי ועשוי להטות את הממצאים. כאשר בוחנים חלבונים הקשורים למערכת החיסון, הפשוטים ביותר לביצוע הם בקרות ניתוחיות, שבהן מבוצע ניתוח דמה (כל השלבים למעט הזרקת החלבון), הזרקת בקרת נשא (כל השלבים, אך במקום הזרקת חלבון, מוזרק אותו נפח של תמיסת הבופר של החלבון בלבד), או שניהם. אלו מסייעים להבחין בין השפעות התלויות בניתוח או בפגיעה ברקמה לבין תוצאה של החלבון עצמו. דפיניטיבי יותר יהיה לכלול בקרת הזרקה של חלבון לא פעיל או לא רלוונטי באותו נפח וריכוז. חשוב לשקול את הגודל היחסי של חלבון הבקרה בהשוואה לחלבון הניסיוני; לדוגמה, C1q הוא חלבון גדול מאוד (~450 kD), ולכן הזרקת חלבון בקרה נפוץ כמו bovine serum albumin (~66 kD) עשויה שלא להיות המתאימה ביותר. לפיכนั้น, C1q שעבר אינאקטיבציה בחום שימש כבקרת חלבון לא פעיל. בהתאם להתפשטות החלבון המוזרק בחלון הזמן הרצוי לפני האיסוף, ניתן לבצע זאת כבקרת תוך-נבדק על ידי הכללת אחד מתנאי בקרה אלו בהמיספירה הנגדית להמיספירה שבה בוצעה ההזרקה הניסיונית, כפי שניתן לראות בתוצאות מייצגות (איור 4 ו-איור 5).
שיקול חשוב בתכנון ניסיוני הוא אסטרטגיית קיבוע הרקמה, שכן הן סוג הקיבוע והן משכו יכולים להשפיע באופן עמוק על ויזואליזציה של חלבונים, על מורפולוגיית הרקמה, ובמקרים מסוימים, על תפקוד החלבון. מקבעים יוצרי קשרי גומלין (crosslinking) כגון פאראפורמאלדהיד (PFA) מספקים בדרך כלל שימור מעולה של ארכיטקטורת הרקמה, אך עלולים להפחית את הגילוי של אפיטופים הרגישים לקיבוע עקב קישור יתר של חלבונים, להגביר את האוטופלורסצנציה, ולהצריך שלב של חשיפת אנטיגן (antigen retrieval). לעומת זאת, מקבעים שאינם יוצרי קשרי גומלין, כגון תמיסות המבוססות על אלכוהול, אצטון או מתנול, משמרים לעיתים קרובות טוב יותר חלבונים הרגישים לקיבוע, אך עלולים לפגוע בשלמות הרקמה. ניתן לצמצם פשרות אלו על ידי אופטימיזציה של משך הקיבוע ושיטתו, כולל שימוש בחתכים קפואים טריים עם קיבוע על השקף, פרפוזיה של מי מלח ולאחריה טבילה קצרה ב-PFA, או קיבוע באמצעות פרפוזיה סטנדרטית, בהתאם למטרות הניסוי. מכיוון שאין אסטרטגיית קיבוע אחת שהיא אופטימלית לכל היישומים, על החוקרים לבחור ולהתאים באופן אמפירי את תנאי הקיבוע בהתבסס על נקודות הקצה הניסיוניות העיקריות שלהם, כדי להשיג את האיזון הטוב ביותר בין שימור הרקמה לבין גילוי חלבונים.
מטרת פרוטוקול זה היא להסדיר את אופן אספקת החלבון ולא לקבוע שיטות לכימות תוצאות ניסיוניות; עם זאת, גישות שונות עשויות להיות שימושיות בהתאם למטרות המחקר. בדוגמה זו, ספיגת חלבון ספציפית לסוג תא מוערכת באמצעות סימון אימונולוגי עם נוגדנים נגד סממנים תאיים (למשל, NeuN עבור נוירונים) וכימות קולוקליזציה עם החלבון הנבדק (איור 5), למרות שקווי עכברים עם רפורטר פלואורסצנטי מספקים אמצעי חלופי לזיהוי אוכלוסיות תאים ספציפיות. תוצאה חשובה נוספת היא דיפוזיה של חלבון, המושפעת רבות מהתכונות הביוכימיות של החלבון המוזרק. כאשר נדרש אפיון מדויק של התפשטות החלבון, אנו ממליצים על הזרקה משולבת של סמן פלואורסצנטי אינרטי, כגון דקסטראנים בעלי משקלים מולקולריים מוגדרים, כדי להעריך את התפלגות ההזרקה ואת הדיפוזיה ברקמה בנקודות זמן מוגדרות לאחר אספקה תוך-גולגולתית. ניסויים אלו בוצעו בעבר על ידי המחברים כדי לקבוע את הפרמטרים הניסיוניים עבור סעיף Representative Results8.
לבסוף, במהלך פתרון בעיות, ייתכן שיהיה צורך באופטימיזציה של זיהוי החלבון וההחדרה תוך-גולגולתית. אתגר נפוץ אחד הוא השגת אות פלואורסצנטי אמין מהחלבון הנחקר. כפי שנדון לעיל, אסטרטגיית הקיבוע היא גורם מרכזי הקובע את איכות האות. אם פלואורסצנציה עצמית גבוהה מלווה באות פלואורסצנטי חלש, מומלץ תחילה להפחית את משך הזמן ו/או את מידת קיבוע הרקמה, שכן קיבוע יתר הוא שכיח ויכול לתרום הן לעלייה בפלואורסצנציה עצמית והן להפחתה באות המטרה. פרוטוקול זה כולל גם תמיסה לכיבוי פלואורסצנציה עצמית, שעלולה לשפר את יחס אות לרעש של הפלואורסצנציה של המטרה. כאשר היא מבוצעת נכון, הזרקה זו אמורה להוביל לנזק רקמתי מינימלי. אין לצפות להיווצרות חללים (cavitation) או נגעים באתר הכניסה של המזרק. אם אחד מאלו קורה, ייתכן שיהיה צורך באופטימיזציה של הכנת הפ pipette-ים שנמשכו מזכוכית כדי להבטיח חדירה נקייה לרקמה. לדוגמה, ודאו שקצה ה-pipette קשיח מספיק ואינו מתכופף במגע עם פרנכימת המוח, והתאימו את זווית החיתוך לפי הצורך כדי ליצור קצה חד המקל על כניסה חלקה. עבור הזרקות לאזורי מוח עמוקים, ייתכן שיהיה צורך להגדיל גם את אורכו של ה-pipette הנמשך כדי לאפשר הגעה לאזור המטרה מבלי שהמזרק יבוא במגע עם פני המוח. כאשר מזריקים את החומר ישירות לתוך פרנכימת המוח ולא לתוך פרוזדור (ventricle), מומלץ להשתמש בנפח הזרקה קטן (<1 µL) כדי למזער בצקת, למנוע היווצרות חללים באתר ההזרקה ולהפחית את זרימת החומר חזרה במהלך נסיגת ה-pipette. כמו כן, מומלץ להזריק לאט (<500 nL/min) ולהמתין 5–10 min לאחר סיום ההזרקה לפני נסיגת ה-pipette כדי לאפשר לחומר המוזרק להתפשט לרקמה הסובבת. אם נצפה נוזל הזורם חזרה לאורך נתיב ההזרקה במהלך הסרת ה-pipette, או אם הוא מזוהה לאורך נתיב ההזרקה לאחר עיבוד אימונוהיסטוכימי, יש להפחית את נפח ההזרקה ו/או את קצב ההזרקה, ולהאריך את תקופת ההמתנה שלאחר ההזרקה.
גילויים
המחברים מצהירים כי אין ניגודי עניינים.
תודות
עבודה זו נתמכה במימון מהמרכז הלאומי לתיאום מחלת האלצהיימר (NACC; NSH), מאיגוד האלצהיימר (NSH), וממענק Germinator של מכון דיוק למדעי המוח (DIBS) (JD).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| סליין 0.9% (בדרגה פרמצבטית) | Cytiva | Z1376 | |
| מזרקים של 30 מ"ל | Becton, Dickinson and Company (BD) | 302832 | |
| 70% אתנול | Koptec | UN1170 | |
| Alexa Fluo 594 C5 Maleimide | Invitrogen | A10256 | |
| מאייד חומרי הרדמה | נתונים מהעולם האמיתי (RWD) | TAIJI-IE | |
| מכשיר סטריליזציה בחרוזי זכוכית | VWR | 75999-324 | |
| BSA | Genessee Scientific | 25-529 | |
| מחט פרפר - Vacutainer Safety-Lok | Becton, Dickinson and Company (BD) | 367281 | |
| כיסויות - 50 מ"מ מס' 1 | Avantor (VWR) | 48393-081 | |
| מכשיר סטריאוקסיס דיגיטלי למכרסמים | נתונים מהעולם האמיתי | 68803 | |
| תבניות הקפאה חד-פעמיות | מדעי המיקרוסקופיה האלקטרונית | 70182 | 22 מ"מ x 22 מ"מ עבור חתכים סגיטליים של מוח עכבר בוגר |
| מיקרוסקופ סטריאוסקופי | Leica | MZ FLIII | |
| תווך שיכון - Tissue-Tek OCT | סאקורה | 4583 | |
| חומר סיכוך לעין | Optixcare | OPX-4242 | |
| מכשיר למשיכת פיפטות זכוכית | Sutter Instrument Co. | דגם P-30 | אנו משתמשים ב-1.14 MM, 3.5" גודל עבור המזרק שלנו |
| פיפטות זכוכית | World Precision Instruments | 504949 | |
| נוגדן משני עיז anti-Rabbit AF594 | Invitrogen | A-11012 | |
| נוגדן משני עיז anti-Rat AF488 | Invitrogen | A-11006 | |
| קרם להסרת שיער | נאיר | 42016527 | |
| במה מחוממת - Rodent Warmer X1 | Stoelting | 53800M | |
| מיקרו-מוטור סיבובי במהירות גבוהה (מקדחה) עם מקדחים | Stoelting | 51449 | |
| איזופלורן | Dechra | איסו-ספייר (Isospire) | |
| מיקרו-מזרק ובקר | WPI | ננו-ליטר 2020 | |
| זכוכיות מיקרוסקופ | בכורה | 8348 | |
| שמן מינרלי, קל | Fisher Scientific Education | S25439 | |
| תוכנית להרכבה עם DAPI | Sigma-Aldrich | F6057 | |
| לק לציפורניים | מדעי המיקרוסקופיה האלקטרונית | 72180 | |
| חלבון complement C1q טבעי מעכבר | Creative Biolabs | CTP-463 | ייתכן שמוצרים של יצרנים אחרים מכילים מזהמים מולקולריים המעכבים את הדינמיקה התקינה של C1q במוח |
| עט לסימון פאפ - ImmEdge Pen | Vector Laboratories | H-4000 | |
| פרהפורמאלדהיד - 16% | מדעי המיקרוסקופיה האלקטרונית | 15710 | דללו ל-4% |
| סליין buffered פוספט (PBS) | Sigma-Aldrich | P3813 | |
| תמיסת פובידון-יוד, 10% (משקל/נפח) | Ricca | 3955-16 | |
| נוגדן ראשוני ארנב נגד C1q | Abcam | ab182451 | |
| נוגדן ראשוני נגד NeuN (RBFOX3) מחולדה | Biolegend | 608451 | |
| ספונין | Sigma-Aldrich | 47036 | |
| להבי סקלפל - מספר 10 | VWR | 76457-442 | |
| פסים לאינדיקציה של קיטור | Steris | 801010 | |
| מקלונים סטריליים עם טיפ כותנה של Puritan | פוריטני | 25-806 1WC | |
| סוכרוז | Sigma-Aldrich | 84097 | |
| מגבות ניתוח | McKesson | 16-6006-B | |
| דבק לרקמות - Vetbond | 3M | 1469SB | |
| תמיסת מלחים בבופר Tris | Sigma-Aldrich | T5941, S7653 | |
| TrueBlack | BIOTIUM | 23007 |
מקורות
- Medawar PB. Immunity to homologous grafted skin; the fate of skin homografts transplanted to the brain, to subcutaneous tissue, and to the anterior chamber of the eye. Br J Exp Pathol. 1948;29(1):58-69.
- Medawar PB. Immunological tolerance. Nature. 1961;189:14-17.
- Guo X, et al. Neuro-immune crosstalk: molecular mechanisms, biological functions, diseases, and therapeutic targets. MedComm (2020). 2026;7(2):e70497.
- Castellani G, Croese T, Peralta Ramos JM, Schwartz M. Transforming the understanding of brain immunity. Science. 2023;380(6640):eabo7649.
- Di Pietro AA, et al. Microglia in systemic neuroimmune communication: functions beyond phagocytosis. Trends Immunol. 2026;47(6):495-510.
- Zhou L, Wang Y, Xu Y, Zhang Y, Zhu C. A comprehensive review of AAV-mediated strategies targeting microglia for therapeutic intervention of neurodegenerative diseases. J Neuroinflammation. 2024;21(1):232.
- Yue W, Shen J. Local delivery strategies for peptides and proteins into the CNS: status quo, challenges, and future perspectives. Pharmaceuticals (Basel). 2023;16(6):810.
- Scott-Hewitt N, et al. Microglial-derived C1q integrates into neuronal ribonucleoprotein complexes and impacts protein homeostasis in the aging brain. Cell. 2024;187(16):4193-4212.e4124.
- Fonseca MI, et al. Cell-specific deletion of C1qa identifies microglia as the dominant source of C1q in mouse brain. J Neuroinflammation. 2017;14(1):48.
- Stevens B, et al. The classical complement cascade mediates CNS synapse elimination. Cell. 2007;131(6):1164-78.
- Schafer DP, et al. Microglia sculpt postnatal neural circuits in an activity and complement-dependent manner. Neuron. 2012;74(4):691-705.
- Hong S, et al. Complement and microglia mediate early synapse loss in Alzheimer mouse models. Science. 2016;352(6286):712-6.
- Wang C, et al. Microglia mediate forgetting via complement-dependent synaptic elimination. Science. 2020;367(6478):688-94.
- Stevens B, Johnson MB. The complement cascade repurposed in the brain. Nat Rev Immunol. 2021;21(10):624-5.
- Stephan AH, et al. A dramatic increase of C1q protein in the CNS during normal aging. J Neurosci. 2013;33(33):13460-74.
- Datta D, et al. Classical complement cascade initiating C1q protein within neurons in the aged rhesus macaque dorsolateral prefrontal cortex. J Neuroinflammation. 2020;17(1):8.
- Ling GS, et al. C1q restrains autoimmunity and viral infection by regulating CD8. Science. 2018;360(6388):558-63.
- Zubler RH, Lange G, Lambert PH, Miescher PA. Detection of immune complexes in unheated sera by modified 125I-C1q binding test: effect of heating on the binding of C1q by immune complexes and application of the test to systemic lupus erythematosus. J Immunol. 1976;116(1):232-5.
- Obermaier C, Griebel A, Westermeier R. Principles of protein labeling techniques. Methods Mol Biol. 2015;1295:153-65.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב