אנו מתארים פרוטוקול נגיש מבחינה טכנית ומשתלם עבור דימוי של שלבי התפתחות מוקדמים של תולעים, שנכתב עבור חוקרים בתחילת דרכם.
מאמר שיטה
דימות התפתחות מוקדמת של תולעת: מדריך מעשי לחוקרים חדשים
* These authors contributed equally
במאמר זה
סיכום
תקציר
על פי רישומי הפצת הזנים ממרכז הגנטיקה של ה-Caenorhabditis (CGC) שהוצגו בכנס התולעים הבינלאומי ה-25 בשנת 2025, כ-8,000 מעבדות ב-80 מדינות משתמשות בבעלי חיים אלה במחקריהן. הקמה של פלטפורמה בת-קיימא לתרבית ותחזוקה חיונית להפקת נתונים ממקור ראשון על התנהגות תולעים, במיוחד במעבדות עם ניסיון או משאבים מוגבלים. כאן, תוך שימוש ב-Caenorhabditis elegans כדוגמה, אנו מציגים פרוטוקול מעשי עבור חוקרים חדשים להקמת תהליכי עבודה בסיסיים לטיפול בתולעים ולדימותן. לאחר מכן אנו מתארים נהלים לאיסוף דגימות C. elegans רגילות ומשובשות בשלבי התפתחות מוקדמים נבחרים לצורך דימות מיקרוסקופי. יעדי הדימות כוללים התפתחות תאי נבט (מיטוזה ומיוזה), אוקיציטים טרום-הפריה, נדידה ומיזוג של גרעינים קדמיים (pronuclear) של אוקיציט וזרע, פסאודו-החלקה (pseudocleavage), והתפתחות עוברית (מיטוזה) המולידה את האורגניזם. למרות שדימות של עוברי תולעים ואורגניזמים שלמים הוא פשוט, אנו מספקים הנחיות משופרות וטיפים טכניים כדי להקל על דיסקציה מדויקת של קו הנבט והעובר, איסוף מהיר של דגימות, קיבוע, דימות בשיטת time-lapse וניתוח תמונה בסיסי.
מבוא
תולעי נמטודה הן מהאורגניזמים המודליים העוצמתיים ביותר במחקר ביו-רפואי1,2, הודות לתכנית התפתחותית בעלת הדירות גבוהה ולגיוון שנחשף באמצעות הפרעות גנטיות3,4,5,6 ומנים קרובים7,8,9,10. מאז הצגתו על ידי סידני ברנר בשנות ה-60, Caenorhabditis elegans (C. elegans) התבסס כנציג המאופיין בגודלו הקטן, בשקיפות אופטית, במחזור חיים מהיר של שלושה ימים, בשושלת תאים המפוענחת במלואה, בגנום רצוף ומאונוטט, ובערכות כלים גנטיות מתקדמות לבקרת תפקוד גנים11,12,13,14,15,16. מרכזית למחקרים אלו היא היכולת להדמיות ויזואליות של אירועים ביולוגיים דינמיים באמצעות מיקרוסקופיה, במיוחד בקו הנבט ובעובר – רצף ההתפתחות ממיוזה ומитоזה ועד להיווצרותו של אורגניזם שלם17. לאורך תהליך זה, חלוקות מיוטיות מהירות וחילוקים מיטוטיים עוקבים, וארגון מחדש רב-תאי, מתקדמים בדיוק מרחבי-זמני יוצא דופן17.
בהשוואה לעובר, המנוטר בדרך כלל in vitro, קו הנבט in vivo מהווה מערכת אידיאלית לחקר המיוזה והמיטוזה בתוך רקמה אחת, במיוחד עבור חוקרים חדשים, שכן האזורים המיוטיים והמיטוטיים המופרדים מרחבית מאפשרים תצפית סימולטנית על מצבי חלוקה תאית נבדלים אלו (איור 1)18. בקו הנבט של C. elegans, המאורגן כסינציטיום, תאי הנבט מקושרים זה לזה באמצעות ליבה ציטופלזמית משותפת – ה-rachis18 (איור 1). פרוליפרציה של תאי נבט מתרחשת באמצעות מיטוזה בזרוע הגונדה הדיסטלית, דרך חלוקות לא שלמות ואסימטריות של תאי נבט ראשוניים (PGC). במהלך השלב המאוחר של ה-larva-4 (L4), ספרמטוציטים בשלב הפכיטן הסינציטיאלי ניתקים בהדרגה מה-rachis ונכנסים למיוזה בזרוע הגונדה הפרוקסימלית19. ניתן לדמות זאת ישירות in vivo בבעלי חיים מקובעים/מורדמים, או in vitro בספרמטוציטים ראשוניים מבודדים20,21.
תופעות ביולוגיות בקו הנבט ובעובר הן עשירות באופן יוצא דופן ורלוונטיות באופן נרחב למגוון תחומי מחקר מדעיים. בעקבות הבשלה מייוטית, ציטות המופקות מתאי נבט נכנסות לספרמטקה כדי להיות הופריות על ידי זרע, מה שמעורר את האמבריוגנזה22,23. העמידות ההתפתחותית המצוינת שלהם הופכת את עוברי C. elegans למודל מצוין לחקר המנגנונים המולקולריים של קוטביות תא, חלוקת תא, מחזור התא ותנועת תאים24,25. ניתן לבצע דיסקציה לתולעים בוגרות צעירות כדי לשחרר עוברים שהופרו זה עתה, אשר נבחרים לאחר מכן לצילומי timelapse של אבני דרך התפתחותיות מרכזיות, הכוללות, אך אינן מוגבלות ל, נדידה ואיחוי של גרעיני הציטה והזרע, פסאודו-ביקוע (pseudocleavage), חלוקת תא אסימטרית, גסטולציה, אורגנוגנזה וכדומה.
אף על פי שגישה אופטית למבנים מלאים וחלקיים בקו הנבט ובעובר היא, באופן עקרוני, תמיד אפשרית, מיקרוסקופיה באיכות גבוהה ובסטנדרט הניתן לפרסום נותרת מאתגרת במיוחד עבור חוקרים מתחילים. פרוטוקולים כתובים "סטנדרטיים" בספרות המקצועית דוחסים לעיתים קרובות הליכים מורכבים לתיאורים דלילים ומעומעמים, שאינם מצליחים להעביר את ה"תחושה" המדויקת של הטכניקה. דוגמאות לכך כוללות את הכמות המדויקת של חומר ההרדמה, הטיפול העדין הנדרש כדי למנוע פגיעה בגונדה במהלך הניתוח, ובחירת מישור המוקד המדויק למיקרוסקופיה. כתוצאה מכך, חוקרים מתחילים עלולים להתמודד באופן שגרתי עם חודשים של ניסוי וטעייה מתסכלים, הדורשים הדרכה חוזרת, תרגול נרחב ופתרון תקלות ממושך לפני השגת תמונות מספקות באופן עקבי. העברה לא יעילה זו של ידע מעכבת את התקדמות המחקר ומכניסה שונות טכנית לא רצויה שעלולה לפגוע בפירוש הנתונים בין מעבדות שונות.
לדוגמה, בקו הנבט, המורכבות האנטומית של הגונדה וחסימות על ידי רקמות אחרות (למשל, המעי) מקשייות את התבוננות המורפולוגיה התאית או דינמיקת החלוקה in vivo. יתרה מכך, קו הנבט מציב אתגרים נוספים בשל מבנהו הצינורי העדין ורגישותו קיצונית ללחץ ההצמדה. לכן, דימוי in vitro מועדף לא רק לתצפית כללית על קו הנבט והעובר, אלא גם לתצפית מפורטת ברזולוציה תאית. לדוגמה, ספרמטוציטים ראשוניים פרוקסימליים בודדים שבודדו מהגונדה יכולים להשלים שני סבבים רצופים של מיוזה כדי להפוך לארבעה ספרמטידים הפלואידים, והיעדר צללי מבנה רקמתיים מקל על לכידת תמונות באיכות גבוהה יותר. ניתן להרחיב תצפיות אלו לרקמות אחרות או לגוף כולו26,27,28,29,30,31,32. באופן נוח, ניתן להשלים כל פעולה תוך 1 h, מה שמקל על ביצוע דימוי timelapse.
כאן אנו מציגים פרוטוקול מעשי ומפורט לצילומי timelapse לאורך שלבים התפתחותיים נבחרים, מפיתוח תאי הנבט ועד להתפתחות העוברית. הפרוטוקול כולל לא רק את הליכי ההדמיה אלא גם את שלבי ההכנה (למשל, דיסקציה של התולעת) כדי להנמיך את החסם הטכני עבור חוקרים שאינם מנוסים בהדמיה של תולעים33. הפרוטוקול שלנו מדגיש הדגמה חזותית בזמן אמת של הדמיה מיקרוסקופית הן עבור קו הנבט והן עבור העובר — החל מהליכי קיבוע (mounting) אופטימליים השומרים על החיוניות לאורך הקלטות של מספר שעות, דרך הגדרת פרמטרי המיקרוסקופ המאזנת בין יחס אות לרעש לבין מזעור פוטוטוקסיות/פוטובליצ'ינג, ועד לרכישת תמונות בסיסית.
פרוטוקול
הערה: תחזוקה מוצלחת לטווח ארוך של אוכלוסיות C. elegans היא הבסיס לעבודות ניסוי עוקבות, והיא מחייבת ייצור עקבי של מצע גידול לנמטודות (NGM) באיכות גבוהה, הגדלה אמינה של מקורות מזון חיידקיים, תנאים סביבתיים מתאימים לצמיחה ולרבייה של הזנים, ואסטרטגיות יעילות למניעת אובדן תרביות עקב זיהום.
1. תרביות תולעים ותחזוקתן
הערה: אנו מספקים כאן המלצות כלליות בלבד; ניתן למצוא נהלים מפורטים ב-Wormbook34. השתמשו באבקת NGM מוכנה מראש כדי לצמצם את שלבי השקילה וההכנה.
- גדלו את כל בעלי החיים על אגר NGM המזרע במזון E. coli OP50 בטמפרטורה של 20 °C עבור זן הבר (WT) ובטמפרטורה של 16 °C או 25 °C עבור מוטנטים רגישים לטמפרטורה (ts mutants).
הערה: סטודנטים חדשים צריכים לוודא את טמפרטורת התרבית עבור זני מוטנטים מה-CGC עם קבלתם.
הערה: בעלי חיים מסוג WT גדלים מהר יותר בטמפרטורות גבוהות; מוטנטים מסוג ts יכולים להפיק עוברים ב-16 °C (טמפרטורה מתירה) אך לא ב-25 °C (טמפרטורה מגבילה שבה הם מראים השפעות של אובדן תפקוד בגן או בחלבון ספציפי)35,36,37,38. ניתן לרכוש את הזנים והמזון מה-CGC [https://cgc.umn.edu] או לקבלם כמתנה ממעבדות סמוכות. - העבירו את בעלי החיים לצלחות חדשות לפני הרעבה (עם כמות מופסקת משמעותית של Escherichia coli (E. coli) OP50 כפי שנראה תחת המיקרוסקופ) כדי לשמור אותם בריאים לניסויים המשך (~2–3 ימים).
- אחסנו את בעלי החיים בבופר הקפאה (בופר S בתוספת גליצרול לריכוז סופי של 15%) בטמפרטורה של -80 °C למשך לילה, והעבירו אותם לקופסת הקפאה או לחנקן נוזלי לאחסון לטווח ארוך34.
הערה: סמנו את כל המבחנות לקריו-שימור בעזרת טושים קבועים, עמידים במים ועל בסיס שמן לפני ההקפאה. דיו על בסיס מים אינו תואם לאחסון בטמפרטורות נמוכות במיוחד.
2. הכנת פד אגרוז
- שקלו 3 g של agarose והעבירו אותם לבקראך (conical flask) בנפח 250 mL. הוסיפו 100 mL של M9 buffer, ערבבו היטב, וחממו בתנור מיקרוגל למשך 2–3 min עד שה-agarose יתמוסס לחלוטין (להלן יכונה agarose buffer).
הערה: כסו את פתח הבקראך בנייר כדי למנוע אידוי של הבאפר ולמזער שגיאות בריכוז האוסמוטי. ניתן להתאים את הנפח הכולל בהתאם לדרישות הניסוי. - העבירו את ה-agarose buffer המעורבב היטב לפסיגות צנטריפוגה בנפח 1.5 mL, אותן ניתן לשמור בטמפרטורת החדר למשך עד חודש אחד. המיסו את ה-agarose השמור בבלוק חימום המכוון ל-90–100 °C (דלגו על שלב זה אם משתמשים ב-agarose שהוכן זה עתה).
- גזרו את הקצה של טיפ פיפטה של 200 µL כדי להרחיב את הפתח ולמנוע סתימה עקב התגבשות, והניחו טיפה של agarose buffer מומס על זכוכית (גודל: 75 x 25 mm; עובי: 0.9–1.10 mm; סוג: soda lime glass).
- כסו מיד את הטיפה עם זכוכית נוספת. מרחו agarose buffer נוסף סביב קצוות כיסוי הזכוכית (coverslips; גודל: 22 x 22 mm; עובי: 0.25 mm) ולחצו בעדינות את האגר לצורת עיגול דק המקיף לחלוטין כל כיסוי זכוכית, תוך הבטחה שאין בועות אוויר כלואות.
הערה: פעולה זו יוצרת מיקרו-תא אטום לקיבוע בעלי החיים ומונעת התייבשות. ניתן לעבד מספר זכוכיתות במקביל עבור ניסויים בעלי תפוקה גבוהה. - הניחו לאגר להתקרר למשך 3 min לפחות עד להתגבשות מלאה לפני השימוש.
הערה: השתמשו במצע ה-agarose לדימיון מיד לאחר התגבשותו, כדי שהבעל החיים לא יהיה תחת עקה. האגר המוצק יספוג מים מהמרכז, מה שיוביל בסופו של דבר למות בעל החיים.
3. תצפית In vivo על ספרמטוגנזה בתולעים הרמאפרודיות או הזכריות (איור 1 ו-סרטון משלים S1)
- הכינו פד אגרוז כפי שמתואר לעיל בסעיף 2.
- העבירו במהירות 10–20 תולעים המסומנות ב-NMY-2::GFP20 (בשלב L4 מאוחר) לתוך 5–10 µL של 0.5% tetramisole hydrochloride מדולל בבופר M9 על לית השמירה (coverslip).
הערה: כדי למנוע תנועה של התולעים והתייבשות, הימנעו מהוספת כמות מרובה או מועטה מדי של בופר. בחרו תולעים שזחלו הרחק מגבול מדשש החיידקים או מחוצה לו (ניתן להבחין בצבר ה-E. coli עם אזור מטושטש וחצי שקוף תחת המיקרוסקופ) כדי למנוע העברה לא מכוונת של E. coli יחד עם התולעת, דבר שעלול להפריע לדימוג. - הדגירו למשך 1 דקה עד שהתולעים יהיו תחת הרדמה מלאה.
- הסירו בעדינות את השקף העליון, והשאירו את פד האגרוז על השקף התחתון.
- הפכו את השקף עם פד האגרוז. געו בעדינות והורידו את הפד אל התולעים שבבופר כדי למנוע היווצרות בועות אוויר. הפכו את השקף כך שלית השמירה תהיה כלפי מעלה.
הערה: הימנעו מתנועה מהירה של לית השמירה, שעלולה לפגוע בגוף התולעת. - באמצעות טיפ של פיפט 200 µL, מרחו וזלין נוזלי מחומם (שחומם מראש יחד עם אגר מוצק), העבירו במהירות את טיפ הפיפט לאורך גבול לית השמירה, ואפשרו לוזלין להתקרר כדי לקבע את לית השמירה לשקף.
- הניחו את השקף על במת המיקרוסקופ לצורך דימוג של התפתחות תאי הנבט.
- עבור תמונות בודדות, הגבירו את עוצמת הלייזר ואת זמן החשיפה כדי למטב את אות הפלואורסצנציה (בהתאם לעוצמת ביטוי הפלואורסצנציה בזנים שונים), אותם ניתן להגביר לפי הצורך לשם ויזואליזציה טובה יותר של הפלואורסצנציה.
- עבור timelapse/Z-stacks, השתמשו בעוצמת עירור נמוכה יותר ובזמן חשיפה קצר יותר כדי למזער פוטוטוקסיות/פוטובליצ'ינג.
הערה: המטרה היא להשיג נתוני דימוג מרחביים וזמניים עם השפעות מינימליות על צמיחת התולעת.
4. תצפית In vivo על חלוקות של PGC (איור 1 ו-סרטון משלים S1)
- הכינו פד אגרוז כפי שמתואר לעיל בסעיף 2.
- העבירו 10 בעלי חיים המסומנים ב-NMY-2::GFP39,40 (משלב L1 מאוחר ועד שלב בוגר צעיר) ל-5–10 µL של 0.5% tetramisole hydrochloride המדולל בבופר M9 על זכוכית כיסוי.
- דגרו למשך 1 דקה עד שהבעלי חיים מקובעים לחלוטין.
- הסירו את השريחה העליונה, והשאירו את פד האגרוז על השريح התחתונה.
- הפכו את השريح עם פד האגרוז. געו בעדינות בפד עם התולעים בבופר כדי למנוע בועות אוויר. הפכו את השريح כך שזכוכית הכיסוי תהיה למעלה.
- אטמו את שולי זכוכית הכיסוי בעזרת וזלין באמצעות טיפ של פיפט 200 µL, כפי שמתואר בשלב 3.6.
- העבירו את השريح לבמה של המיקרוסקופ לצורך הדמיה.
5. נתיחה של השורה הנבטית לצורך תצפית in vitro על ספרמטוגנזה זכרית (איור משלים S1 וסרטון משלים S2)
הערה: ניתן להתאים את גודל המזרק בהתאם להעדפה אישית. זכרים בעלי קו נבט שלם ויחיד המכיל גונדה אחת, בעוד שלהרמאפרודיטים יש שתי גונדות (שתיהן מייצרות זרע משלב L4 המאוחר ועד לשלב הבוגר הצעיר, ומייצרות תאי ביץ בשלבים מאוחרים יותר)41.
- הכן טרי במבחנה (in vitro) בופר תרבית (מצע לייבוביץ L-15 המכיל 15% FBS).
הערה: יש לאחסן את הבאפר ב- 4 °C במקרר למשך שבוע לכל היותר. ניתן לחלק את הסרום למבחנות שונות לצורך שימור לטווח ארוך ב-20 °C. - העבירו כ-10 תולעי זכר מסוג N2 או תולעים המסומנות פלואורסצנטית (NMY-2::GFP; mCherry::Histone) (בשלב L4 מאוחר) אל מבחנה לצנטריפוגה בנפח 1.5 מ"ל המכילה 500 µL של באפר תרבית.
- סבבו את המבחנה בצנטריפוגה במהירות של 1,000 × ג במשך 2 דקות. הסר בעדינות את השכבה העליונה של 400 µL של תמיסת בופר.
- הוסף 400 µL של בופר תרבית וחזור על שלבים 5.2–5.3.
- העבירו את שארית התמיכה (המכילה את בעלי החיים) אל על זכוכית כיסוי. הוסיפו נפח מתאים של tetramisole hydrochloride (ריכוז סופי 0.1%) או levamisole (ריכוז סופי 0.1 mM) כדי לשבת את הנמטודות באמצעות אגוניזם של קולטני אצטילכולין ניקוטיניים.41 ופעילות של חומר מאלח מקומי42סובבו בעדינות את לבישת הזכוכית עד שהתולעים מפסיקות לזוז.
הערה: כדי להפחית עלויות, ניתן להשתמש בבופר M9 לשטיפות הראשוניות להסרת השאריות או *E. coli*יש להוסיף בופר תרבית רק במהלך השטיפה האחרונה או לפני הכנת השקופית. ניתן להשמיט את שלבים 5.2–5.3 כדי להאיץ את התהליך עבור דרישות מיוחדות או אם הבופר נקי מאוד. - חברו שתי מחטים בכיול 28G למזרקים, כאשר ביד כל אחת מחזיקים מזרק אחד. הניחו את כיסוי הזכוכית (coverslip) תחת מיקרוסקופ הדיסקציה, ומקמו את המחטים בזווית של 30–45° זווית מעל התולעת. בצעו חתך ליד זרוע הגונד הפרוקסימלית כדי לשחרר רקמה גונדלית. חזרו על הפעולה עבור כל בעלי החיים.
הערה: פעולה זו תגרום לשחרור שיירי רקמה. למתחילים, מומלץ לתרגל יותר. זמן הנתיחה המלא המקסימלי בבפפרי מסיחים (paralytic buffers) עשוי להימשך עד <5 דקות. התאימו את התזמון בהתאם למטרות הניסוי. - סובבו את כיסית הזכוכית (coverslip) ואספו את השאריות. שאבו בעדינות את השאריות הגדולות באמצעות פיפטה והשאירו כמות מזערית ככל האפשר של התמיכה (buffer), תוך הבטחה שספרמטוכיתים ראשוניים קטנים יישארו על כיסית הזכוכית.
הערה: הימנעו מהשארת כמות מרובה מדי של בופר תחת זכוכית הכיסוי; עודף גורם לתזוזה במהלך הסמיכה. - קחו זכוכית כיסוי נקייה וכסו אותה בעדינות בספרמטוציטים ראשוניים שבוצע להם דיסקציה. אטמו את שולי זכוכית הכיסוי בעזרת וזלין נוזלי מחומם, כפי שמתואר בשלב 3.6.
הערה: מרחו כמות קטנה של וזלין נוזלי בארבע פינות של זכוכית הכיסוי לפני האיטום, כדי למנוע פגיעה מכנית בספרמטוציטים. - העברה למיקרוסקופ לצורך דימוי.
הערה: הימנעו משימוש ברפידות אגרוז. מצע נוזלי מספק רקע שקוף יותר, המעניק בהירות אופטית גבוהה יותר לצורך הבחנה בין הספרמטוציטים הראשוניים.
6. דיסקציה של התולעים ותצפית in vitro על הפריה ועובריות תחת פלואורסצנציה (איור משלים S2, איור משלים S3, סרטון משלים S3, ו סרטון משלים S4) ובתאורה רגילה (Figure 2 ו סרטון משלים S5)
הערה: עוברים בשלב מוקדם התקבלו על ידי הצלבה של שתי מחטים במידה 28G, כאשר פתחי השיפוע פונים לכיוונים מנוגדים בקרבת הספרמטקה (spermatheca). התא נחתם כדי למנוע התאיידות של הנוזל והועבר באופן מיידי למיקרוסקופ.
- כדי לבטל את השפעת הלחץ שמפעילים כיסוי הזכוכית ופד האגרוז על העובריים, קדחו חור מרכזי בקוטר 10 mm בצלחת פטרי בקוטר 35 mm באמצעות מקדחה. אטמו את הצד התחתון עם זכוכית כיסוי למיקרוסקופ בקוטר 22 mm כדי ליצור תא רב-פעמי עבור מיקרוסקופיה קונפוקלית הפוכה.
- הוסיפו כ-30 µL של תמיסת M9 לתוך התא.
הערה: נפח זה מספיק ל-4 שעות של דימות timelapse בכל סבב. נפח התמיסה מאפשר דימוי רציף מ נדידה ומיזוג של פרו-גרעיני הביצית והזרע ועד לתנועות השרירים של העובר לפני הבקיעה. - בחרו הרמאפרודיטים. העבירו כ-20 בעלי חיים צעירים בשלב הבגרות אל תמיסת ה-M9 בתא הדימוי.
הערה: זכרים מייצרים זרע בלבד, לא עובריים. - השתמשו במחט של מזרק כדי לבצע חיתוך רוחבי ב-spermatheca פעמיים כדי לשחרר יותר עובריים בשלבים מוקדמים. השתמשו במלקט ריסים כדי להסיר את גוף בעל החיים.
הערה: באופן מעשי, מלקט פלטינה הוא קשיח מדי להסרת שאריות הגוף בנוזל. אנו ממליצים להשתמש במלקט ריסים מלאכותיים (בעל קצוות מרובים) להסרת השאריות בדומה למזלג, אשר מתפקד טוב יותר ממלקט ריסים רגיל. - כסו את צלחת הפטרי במכסה כדי למנוע התאדות של הנוזל.
7. דימוי במסלול זמן (Timelapse) תחת מיקרוסקופיה
- הנח את הזכוכית/התא על המיקרוסקופ (למשל, מיקרוסקופ קונפוקאלי מסוג inverted spinning-disk, המצויד בעדשה אובייקטיבית 60×/1.4 NA ומצלמת EMCCD) תחת שדה בהגדלה הנמוכה ביותר (10×), וחפש בעלי חיים, ספרמטוציטים ראשוניים או עוברים שהופרו זה עתה בשלב הרצוי.
- עבור תולעים שאינן פלואורסצנטיות, קבע את שלב ההתפתחות של עוברים מוקדמים באמצעות מיקום גרעין התא, מצב ההיתוך ומורפולוגיית חריץ הפילוח (איור 2 וסרטון משלים S5).
- עבור ספרמטוציטים ראשוניים שבוצע להם דיסקציה in vitro, חפש תאים המתכוננים לחלוקה, אשר ניתקו מה-rachis ומפוזרים בצורה עגולה בבופר (איור משלים S1 וסרטון משלים S2).
- עבור תולעים פלואורסצנטיות, זהה את השלבים בהתבסס על התפלגות החלבון ומורפולוגיית התא.
הערה: פלואורסצנציה זוהתה באמצעות קו עירור של 488 nm עם פילטר פליטה של 525–550 nm עבור GFP, וקו עירור של 561 nm עם פילטר פליטה של 607–636 nm עבור RFP/mCherry.
- אתר תאים או עוברים אלו ועבור להגדלה גבוהה יותר (63× או 100×).
הערה: מכיוון שעקרונות ההכנה והדימות של תאים ועוברים הם זהים, מדריך הניסוי המומחשה מדגים את המקרה של עוברים שעברו דיסקציה תוך שימוש בערוצי שדה בהיר ופלואורסצנציה. - התחל הקלטת וידאו של Z-stack (בדרך כלל ברווח של ≤1 µm) או צילום תמונות (snapshots) באמצעות תוכנת הרכישה של המיקרוסקופ, עם מרווח סריקה של עד 1 s, תלוי במספר שכבות ה-Z ובדרישות המחקר.
הערה: עבור זנים פלואורסצנטיים הרגישים להלבנה פוטוכימית (photobleaching) או לרעילות פוטוכימית (phototoxicity), הנמך את הספק הלייזר וקצר את זמן החשיפה כדי לצמצם הלבנה/רעילות פוטוכימית במהלך דימות לטווח ארוך. - שמור את כל התמונות בפורמט .tiff לצורך פלט תמונות ושמור את מידע הדימות המקורי.
8. ניתוח תמונות
הערה: ניתן לסובב, לחתוך, לסמן, למדוד ולעבד תמונות .tiff בודדות או ערימות timelapse באמצעות תוכנה ייעודית למיקרוסקופ או תוכנת ניתוח כללית כגון Fiji/ImageJ [https://imagej.net/software/fiji], פלטפורמה בקוד פתוח לניתוח תמונות ביולוגיות43.
- פתחו את התמונות שהושגו ב-Fiji/ImageJ. בדקו את עוצמת אות הפלואורסצנציה ואת ההתפלגות של נקודות פלואורסצנטיות (puncta) או מבנים בודדים. בחרו ב- Image | Adjust | Brightness/Contrast וב- Image | Hyperstacks | Stack to Hyperstack כדי להפריד בין הערוצים, שכבות ה-Z ונקודות הזמן בתמונת tiff אחת. בחרו ב- Image | Color | Channels Tool כדי למטב את מאזן הצבעים לצורך הצגה.
- השתמשו ב- Image | Transform | Rotate כדי לסובב כל תמונה כך שהתולעת תהיה מכוונת אופקית כאשר הראש פונה שמאלה. השתמשו ב- Image | Crop כדי להסיר אזורים ריקים מיותרים במידת הצורך.
- השתמשו ב- Image | Stacks | Z Project כדי להפיק היטל Z (Z-projection) מפריימים מייצגים בעלי אות מספיק.
הערה: לצורך ויזואליזציה מיטבית, מומלץ להפיק היטל של פריימים בעלי ניגודיות גבוהה יחד. עם זאת, כדי להשוות הבדלים יחסיים בתוך אותן רקמות או אבנים סלולריות ספציפיות בין קבוצות שונות, ניתן להפיק היטל של מספר פריימים המכילים מידע מלא, גם אם האות חלש. - השתמשו ב- File | Save As | Tiff כדי לשמור את התמונות המהותלות לניתוח המשכי.
- בהתאם למיקרוסקופ הקונפוקלי שבו השתמשתם, כיילו את קנה מידה של התמונה כך שפיקסלים יומרים למיקרומטרים (µm). לאחר הכיול, השתמשו ב- Analyze | Tools | Scale Bar כדי להוסיף סרגל קנה מידה.
הערה: עיבוד התמונות שלעיל מוגבל לוויזואליזציה ולהכנת דמויות. כאשר נדרש עיבוד באצוות (batch processing) או מדידות אוטומטיות, השתמשו ב-Fiji/ImageJ או בכלים אחרים בקוד פתוח, כגון CellProfiler44 וצינורות ניתוח מבוססי Python45.
תוצאות
הדמיה של C. elegans ברמה התאית לצורך ניתוח פנוטיפי דורשת באופן מסורתי השקעה ניכרת בציוד אופטי, אך כיום, מוצרי אלקטרוניקה צרכנית ומערכות מתאמים חדשניות מאפשרים יכולות דימוי מספקות בעלות מופחתת משמעותית. כדי לדמיין את מבנה הגונד של הרמאפרודיטים in vivo באמצעות מיקרוסקופיה קונפוקלית או מכשירים זמינים אחרים, אנו משתמשים בזן הנושא שני סממנים פלואורסצנטיים20, כאשר NMY-2::GFP מסמן את המבנה הכללי של הגונד בצורת U, את הרכיס (rachis) ואת האזור הקורטיקלי של הספרמטוכיתים הראשוניים, ו-mCherry::Histone מראה את מורפולוגיית הגרעין ואת שלב הפיתוח (איור 1 וסרטון משלים S1). שני חלבונים אלו נמצאים בשימוש נרחב במחקרים שונים46,47,48. כדי ללכוד את מרב המידע המבני בתלת-ממד, רכשנו את כל ה-Z-stack במרווחים של 1 µm מהחלק התחתון ועד החלק העליון של גונד התולעת. בהתבסס על המסה הדחוסה של הכרומוזום והצבירה החלשה של NMY-2 באזור המשווה, הספרמטוכיתים הראשוניים הפרוקסימליים ביותר נמצאים בשלב הקריוזום, מה שמעיד על כך שתאים אלו מתחילים את חלוקתם הראשונה (איור 1 וסרטון משלים S1). בנוסף, חלוקות מיטוטיות של PGCs מתרחשות באזור הדיסטלי של הגונד וניתן ללכוד אותן גם באמצעות פרוטוקול זה.
לצורך תצפית in vitro על ספרמטוגנזה, אנו מכינים תחילה את באפר התרבית. התולעים מנוסחות, וספרמטוציטים של קו הנבט משוחררים אל הבאפר. קריטי לאתר במהירות את הספרמטוציטים הראשוניים המתכוננים לחלוקה הראשונה שלהם, המזוהים על פי מורפולוגיה גרעינית (תחילת פירוק המעטפת הגרעינית) או על פי מורפולוגיה של התא כולו. זנים פלואורסצנטיים מקלים על זיהוי שלב ההתפתחות הנכון. תמונות נלכדות במרווחים של 30 s כדי לאזן בין פוטוטוקסיות/פוטובליצ'ינג לבין יעילות הלכידה. (איור משלים S1 וסרטון משלים S2).
כדי להשיג מידע נוסף על אמבריוגנזה מוקדמת, ראשית אנו מאתרים עוברים שהופרו לאחרונה תחת ערוץ שדה בהיר (brightfield), שבו הגרעינים האבויים והאימוויים ממוקמים בקצוות מנוגדים של העובר לאורך הציר הראשי שלו ונעים זה לקראת זה לצורך התמזגות. לצורך תצפית בעוברים באמצעות סליידים סטנדרטיים, השתמשנו בזן המבטא GFP::Histone.49 ו-mCherry::PH50 לסימון גרעין התא ודינמיקת ממברנת התא, בהתאמה. תמונות אלו נלכדות בשכבות Z שונות כדי להציג את חלוקת התא המלאה (איור משלים S2 ו- סרטון משלים S3). שימו לב כי היכולת לזהות את העוברים בשלב הנכון היא חיונית. בחרנו עוברים בשלב מוקדם והשתמשנו בהקלטה רציפה כדי ללכוד את מהלך ההתפתחות המלא ללא הפרעה פיזית. גישה זו מאפשרת >500 דקות של הקלטת timelapse המקיפות את התהליך כולו, מההפריה ועד לתנודות השרירים (איור 2 ו- סרטון משלים S5). בנוסף לטיפוס הפרא (wild-type), קיימים גם מוטנטים למחקרים השוואתיים של דימות. לדוגמה, HUM-2 הוא ההומולוג של myosin V אנושי, הממלא תפקידים קריטיים בפיזור של אבניות, שלפוחיות ו-mRNA, והוא חשוב לפיזיולוגיה של בעלי חיים ולתפקוד התאי.51כדוגמה להמחשה, הפרוטוקול שימש גם ללכידת הדינמיקה של התלם ב- hum-2 (ok596מוטנט להשוואה ויזואלית (איור משלים S3 ו- סרטון משלים S4לבסוף, תמונות ה-tiff מעובדות ונחתכות ב-ImageJ/Fiji ומיושרות בתוכנה לעריכת תמונות לצורך השוואה חזותית ישירה.52.
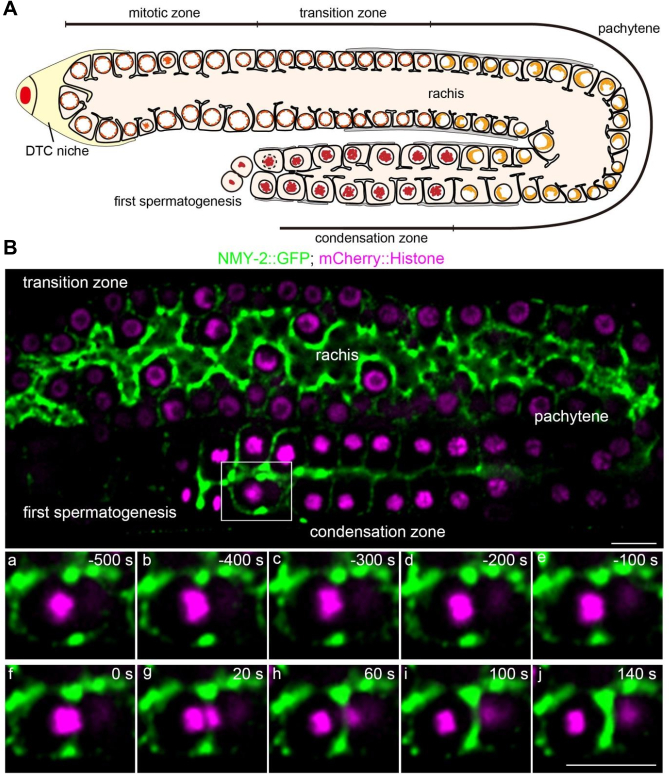
איור 1: תרשים ותמונת פלואורסצנציה של התפלגות אזורי הגונד בתולעים בשלב L4 מאוחר. (A) תרשים של מבנה הגונד בתולעה בשלב L4 מאוחר. DTC = תא קצה דיסטלי. (B) תמונת פלואורסצנציה המראה סימון של NMY-2::GFP של הרכיס (rachis) והאזור הקורטיקלי של ספרמטוציטים פרוקסימליים, וסימון של mCherry::Histone של מורפולוגיית הגרעין בשלבי התפתחות שונים. סרגל קנה מידה = 10 µm. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
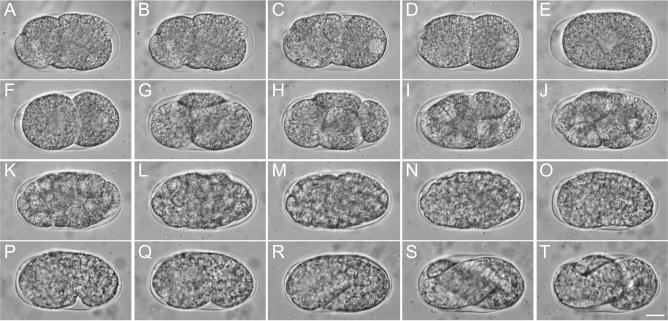
איור 2: התפתחות עוברית של C. elegans. (A-E) משלב ההיתוך ועד לשלב התא הבודד, הכולל נדידה והיתוך של גרעיני התא של הביצית והזרע, פסאודוקליבאז' (pseudocleavage), וביסוס של שלב התא הבודד. (F-J) משלב שני התאים ועד לשלב רב-תאי. (K-O) שלב הגסטולציה. (P-T) משלב הפסיק (comma stage) ועד להתכווצויות השרירים. סרגל קנה מידה = 10 µm. אנא לחצו כאן כדי להציג גרסה מוגדלת של איור זה.
איור משלים S1: הדגמה מייצגת של דימות ספרמטוגנזה מלאה. (A) תחילת התפרקות מעטפת הגרעין. (B) פרומטפאזה של מייוזה I. (C) היווצרות טבעת התכווצות ותחילת היצרוק; (D) השלמת מייוזה I; (E) תחילת מייוזה II. (F) היצרוק של חריץ בשני ספרמטוציטים משניים. (G) טלופאזה של מייוזה II. (H) השלמת מייוזה II והיווצרות ארבעה ספרמטידים וגוף שארית אחד הממוקם במרכז. סרגל קנה מידה = 10 µm. אנא לחץ כאן להורדת קובץ זה.
איור משלים S2: הדגמה מייצגת של דימוי התפתחות עוברית מוקדמת, כאשר GFP::Histone מסמן את גרעין התא ו-mCherry::PH מסמן את ממברנת התא. (A) פסאודו-ביקוע (Pseudocleavage). (B) נסיגה של חריץ הביקוע חזרה למצב רגיל. (C) מטאפאזה של חלוקת התא הראשונה. (D) אנאפאזה של חלוקת התא הראשונה. (E) שלב שני התאים. (F) אנאפאזה של חלוקת תא AB ופרופאזה של חלוקת תא P1. (G) אנאפאזה של חלוקת תא P1. (H) שלב ארבעה התאים. סרגל קנה מידה = 10 µm. נא ללחוץ כאן כדי להוריד קובץ זה.
איור משלים S3: השוואה מייצגת של שקע הפילוג בעוברים מוקדמים של N2 ושל מוטנט hum-2 (ok596). פאנל התקריב מציג את דינמיקת השקע לאורך זמן לצורך השוואה חזותית. המספרים מציינים את הזמן לאחר תחילת האנפזה, המוגדרת על ידי הפרדת הכרומוזומים. סרגל קנה מידה = 2 µm. אנא לחץ כאן להורדת קובץ זה.
סרטון משלים S1. דימוי timelapse פלואורסצנטי מייצג של גונדה בשלב L4 מאוחר באמצעות NMY-2::GFP ו-mCherry::Histone; 30 s לכל פריים.אנא לחץ כאן כדי להוריד קובץ זה.
סרטון משלים S2. דימוי timelapse מייצג בשדה בהיר של ספרמטוגנזה מלאה ב-him-5 (e1490); 30 s לכל פריים.אנא לחץ כאן להורדת קובץ זה.
סרטון משלים S3. דימוי פלואורסצנציה רפרודוסטיבי בשיטת timelapse של התפתחות עוברית מוקדמת באמצעות GFP::Histone ו-mCherry::PH; 30 s לכל פריים.אנא לחצו כאן כדי להוריד קובץ זה.
סרטון משלים S4. הדמיית timelapse פלואורסצנטית מייצגת של חריץ ההפרדה בעוברים מוקדמים של N2 ושל מוטנט hum-2 (ok596); 15 s לכל פריים. אנא לחץ כאן להורדת קובץ זה.
סרטון משלים S5. דוגמה של דימוי timelapse בשדה בהיר (brightfield) של התפתחות עוברית של C. elegans מזן N2, מההיתוך של הפרו-גרעינים של הביצית והזרע ועד לחלוקות המיטוטיות היוצרות את האורגניזם.אנא לחצו כאן כדי להוריד קובץ זה.
דיון
להכנה והדמיה של תולעים, ייעלנו שני זרימות עבודה המבוססות על תאים ושקופיות, בהתאמה. הגישה המבוססת על תאים שימשה ל הדמיה חיה ברזולוציה גבוהה, המאפשרת תצפית ארוכת טווח על תהליכי התפתחות עם פוטוטוקסיות/פוטוביליצ'ינג מוגבלים53. הגישה המבוססת על שקופיות הותאמה מטכניקות סטנדרטיות של קיבוע על פדי אגרוז, הנפוצות לתצפית קצרה על פעילות נוירונלית ומבנים תת-תאיים54. יישמנו את שני הפרוטוקולים (סעיפים 3, 4, 5 ו-6) לתצפיות ארוכות טווח לאורך שלבים התפתחותיים מוקדמים נבחרים של C. elegans. בנוגע לתצפית in vivo על מבנה הגונד, חלוקות PGC או ספרמטוגנזה, פעלנו לפי הפרוצדורות המרכזיות של שיטות שהוקמו בעבר וביצענו התאמות מסוימות לגישה מהירה וקלה עבור חוקרים חדשים55. בנוגע לתצפית in vitro על ספרמטוגנזה, אנו מדגישים את הזיהוי המהיר של תאים העוברים מעבר מפרופאזה למטאפאזה, כאשר המעטפת הגרעינית מתפרקת56. למרות שפדי אגרוז יכולים לשמש כבופר ולייצב חלקית עוברים או תולעים להדמיה in vivo, הם מפחיתים את הניגודיות בין ספרמטוכיות ראשוניות לבין השקופית. לכן, פדי אגרוז אינם מומלצים לתצפית in vitro של ספרמטוכיות מבודדות; מומלץ להשתמש במדיום נוזלי. באופן דומה, זיהוי מהיר של שלבים התפתחותיים ספציפיים בעלי עניין מודגש עבור תצפית in vitro של אמ בריוגנזה.
על ידי שילוב השיטות שלעיל, ניתן לדגם אירועים התפתחותיים נבחרים משלב תאי הנבט ועד לעובר. ניתן לשלב שיטות אלו גם עם ציוד לבקרת טמפרטורה, כגון מערכות לשינוי מהיר של הטמפרטורה עבור דימות תאים חיים, מה שהופך את הניסויים לנוחים יותר עבור מוטציות הרגישות לטמפרטורה57. באופן דומה, קיבוע מבוסס קירור יכול לאפשר דימות של אוכלוסיות C. elegans ברזולוציית סב-מיקרון ובספיקת עיבוד גבוהה ישירות על מצעי גידול, ובכך לצמצם את הצורך בהרדמה כימית או במניפולציה אינדיבידואלית של תולעים תוך שמירה על חיוניות פיזיולוגית58. בנוסף, ניתן לשלב עם המיקרוסקופיה הפרעות מלאכותיות, כגון השתקת RNA (RNA interference)14 ואבלציה בלייזר59,60,61,62,63,64,65, כדי לבחון תגובות התפתחותיות ומכניזמים ביולוגיים או פיזיקליים בבסיסן. בעתיד, ניתן יהיה לשפר עוד את זרימות העבודה של המיקרוסקופיה על ידי אופטימיזציה של החומרה, התוכנה והתפעול הספציפי למשתמש33,66. למרות שפרטי תפעול ספציפיים ידרשו התאמה, עקרונות נבחרים של פרוטוקול זה עשויים להתאים למודלים אחרים של בעלי חיים קטנים וניידים, כגון זבוב הפירות וזחלי דגי זברה, ובמיוחד עבור תצפיות in vivo הדורשות קיבוע ותצפיות in vitro הדורשות דיסקציה67,68.
מאגרי נתונים של תמונות שנרכשו באמצעות פרוטוקולים מסוג זה יכולים לתמוך גם בניתוחים חישוביים או כמותיים בהמשך, כאשר נעשה שימוש במספר דגימות מספיק ובהגדרות רכישה סטנדרטיות69,70. לדוגמה, האמ בריוגנזה של C. elegans שימשה במחקרים של מעקב אחר שושלת תאים71,72 וסגמנטציה של מורפולוגיית תאים73,74,75, ששניהם מסתמכים על נתוני דימוי מרחביים-זמניים. מנקודת מבט מכניסטית, דימוי של גרעינים, ממברנות, חלבונים הקשורים לקוטביות76,77,78, וחלבונים הקשורים לשלד התא79,80,81 יכולים לתמוך בניתוח של חלוקת תאים ומורפוגנזה. ביולוגיה מערכתית כמותית יכולה לשלב סוגים אלו של נתוני דימוי במקשקלים מולקולריים, תאיים ושל האורגניזם82,83,84,85. בפרוטוקול הנוכחי, יש לראות יישומים רחבים אלו כהרחבות פוטנציאליות ולא כתוצאות שהודגמו ישירות על ידי התוצאות המייצגות.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תודות
אנו מודים לפרופ' Samuel H. Chung, לפרופ' Erin J. Cram, לפרופ' Javier Apfeld ולד"ר Noa William Franklin Grooms מאוניברסיטת Northeastern, ולפרופ' Chuanfu Dong מאוניברסיטת בייג'ינג הנורמלית על תמיכתם הטכנית. עבודה זו נתמכה כלכלית על ידי פרויקט הנוער של הקרן הלאומית למדעים טבעיים (מענק 22407016) ופרויקט הקרן הלאומית למדעים טבעיים (מענק 22477010) עבור ד"ר Pei Zhang.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מזרקי אינסולין U-100, מחט במידה 28 Gauge | EasyTouch | B08589MG8D | ניתוח תולעים |
| צלחיות פטרי בקוטר 35 מ"מ | Celltreat | 229638 | תא דימות |
| צלוחיות פטרי 60 מ"מ | Fisherbrand | AS4050 | תרבית תולעים |
| אגרוז | Bio-Rad | 1613100 | הכנת רפידת אגרוז |
| C. elegans ספריית הזנה של RNAi (Ahringer) | Source BioScience Ltd. | לא רלוונטי | ניסוי RNAi |
| C. elegans זן: GFP::histone; mCherry::PH | מרכז הגנטיקה של Caenorhabditis | YC0154 | הזן ששימש במחקר זה |
| C. elegans זן: GFP::HUM-2 | Sunybiotech | YC0381 | הזן ששימש במחקר זה |
| *C. elegans* זן: him-5 (e1490) | מרכז הגנטיקה של Caenorhabditis | CB4088 | הזן ששימש במחקר זה |
| C. elegans זן: N2, פראי (wild-type) | Caenorhabditis Genetics Center | N2 (בריסטול) | הזן ששימש במחקר זה |
| C. elegans זן: NMY-2::GFP; mCherry::histone | Caenorhabditis Genetics Center | YC0032 | הזן שנעשה בו שימוש במחקר זה |
| C. elegans זן: PH::GFP; mCherry::histone | Caenorhabditis Genetics Center | YC0029 | הזן ששימש במחקר זה |
| מיקרוסקופ בניגודיות הפרעה דיפרנציאלית (DIC) | Olympus | BX53 | דימוי תולעים |
| מיקרוסקופים סטריאו-דיססקציה | Nikon | SMZ745 | תצפית בתולעים |
| E. coli OP50 | מרכז הגנטיקה של Caenorhabditis | OP50 | מקור מזון בקטריאלי |
| סרום עגל עוברי (FBS) | לא רלוונטי | לא רלוונטי | בופר תרבית |
| בפר הקיפאון (S buffer/גליצרול) | לא רלוונטי | לא רלוונטי | אחסון לטווח ארוך |
| זכוכית כיסוי להיברידיזציה | Invitrogen (Thermo Fisher Scientific) | H18200 | הכנת רפידה/תא אגרוז |
| איזופרופיל β1-thiogalactopyranoside-D (IPTG) | Invitrogen (Thermo Fisher Scientific) | 15529019 | תרבית תולעים |
| מדיום L-15 של לייבוביץ' (Leibovitz's L-15 medium) | לא רלוונטי | מכיוון שלא סופק טקסט למקור, אין תוכן לתרגום. אנא ספק את הטקסט באנגלית המיועד לתרגום. | בופר תרבית |
| לוואמיזול הידרוכלוריד | לא רלוונטי | כיוון שלא סופק טקסט מקור לתרגום, אנא ספק את התוכן באנגלית המיועד לתרגום לעברית. | קיבוע תולעים |
| בפר ב-M9 | לא רלוונטי | לא רלוונטי | תרבית תולעים והרכבה |
| זכוכית כיסוי למיקרוסקופ | Fisherbrand | 12541016 | שקפי הדמיה |
| מדגרה דיגיטלית מיניאטורית | Benchmark Scientific | BMS-H2200-HC-E | גידול תולעים |
| אבקה מוכנה מראש של NGM | לא רלוונטי | אנא ספק את הטקסט באנגלית שברצונך לתרגם. | גידול תולעים |
| מיקרוסקופ הפוך Nikon Eclipse Ti2-E | Nikon | Ti2-E | דימוי תולעים |
| זכוכית למשטיח מיקרוסקופ פשוטים | Fisherbrand | 12550A3 | שקופיות לדימוי |
| זכוכיות מיקרוסקופ רגילות | Corning | 2947-75X25 | הכנת פד אגרוז (Agarose pad) |
| מיקרוסקופ קונפוקלי בעל דיסק מסתובב | Olympus | SpinSR10 | דימוי תולעים |
| יחידת מיקרוסקופ קונפוקלי עם דיסק מסתובב | Yokogawa | CSU-X1 | דימות במרווחי זמן (Time-lapse imaging) |
| טטראמיסול | Sigma-Aldrich | L9756 | הרדמת תולעים |
| וזלין | Sangon Biotech | A510146-0500 | שקפיות לדימות |
מקורות
- Corsi AK, Wightman B, Chalfie M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 2015;200(2):387-407.
- Ambros VR, et al. From nematode to Nobel: how community-shared resources fueled the rise of Caenorhabditis elegans as a research organism. Proc Natl Acad Sci U S A. 2025;122(48):e2522808122.
- Du Z, et al. De novo inference of systems-level mechanistic models of development from live-imaging-based phenotype analysis. Cell. 2014;156(1):359-72.
- Xiao L, et al. Defect-buffering cellular plasticity increases robustness of metazoan embryogenesis. Cell Syst. 2022;13(8):615-30.e9.
- Green RA, et al. Automated profiling of gene function during embryonic development. Cell. 2024;187(12):3141-60.e23.
- Yang M, Bai Y, Wang Z, Du Z. Intracellular buffering enables developmental robustness after genome doubling in C. elegans embryos. Cell Rep. 2026;45(3):117005.
- Laugsch M, Schierenberg E. Differences in maternal supply and early development of closely related nematode species. Int J Dev Biol. 2004;48(7):655-62.
- Guan G, Luo C, Tang HL, Tang C. Modulating cell proliferation by asymmetric division: a conserved pattern in the early embryogenesis of nematode species. MicroPubl Biol. 2024;10.17912/micropub.biology.001006.
- Large CRL, et al. Lineage-resolved analysis of embryonic gene expression evolution in C. elegans and C. briggsae. Science. 2025;388(6753):eadu8249.
- Zhang P, et al. Biosynthesis of modular signaling molecules requires functional diversification of carboxylesterases in Pristionchus pacificus. Commun Biol. 2025;8(1):1213.
- Brenner S. The genetics of Caenorhabditis elegans. Genetics. 1974;77(1):71-94.
- Sulston JE, Schierenberg E, White JG, Thomson JN. The embryonic cell lineage of the nematode Caenorhabditis elegans. Dev Biol. 1983;100(1):64-119.
- C. elegans Sequencing Consortium. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 1998;282(5396):2012-8.
- Chung SH, et al. Femtosecond laser ablation reveals antagonistic sensory and neuroendocrine signaling that underlie C. elegans behavior and development. Cell Rep. 2013;4(2):316-26.
- Zhang H, Abraham N, Khan LA, Gobel V. RNAi-based biosynthetic pathway screens to identify in vivo functions of non-nucleic acid-based metabolites such as lipids. Nat Protoc. 2015;10(5):681-700.
- Huang X, et al. PIWI-interacting RNA expression regulates pathogenesis in a Caenorhabditis elegans model of Lewy body disease. Nat Commun. 2023;14(1):6137.
- Schnabel R, Hutter H, Moerman D, Schnabel H. Assessing normal embryogenesis in Caenorhabditis elegans using a 4D microscope: variability of development and regional specification. Dev Biol. 1997;184(2):234-65.
- Wang X, Hu B, Zhao Z, Tse YC. From primordial germ cells to spermatids in Caenorhabditis elegans. Semin Cell Dev Biol. 2022;127:110-20.
- L’Hernault SW. Spermatogenesis. In: Riddle DL, Blumenthal T, Meyer BJ, Priess JR, editors. C. elegans II. 2nd edition. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY; 1997.
- Wang X, et al. Cortical recruitment of centralspindlin and RhoA effectors during meiosis I of Caenorhabditis elegans primary spermatocytes. J Cell Sci. 2021;134(3):jcs238543.
- Hu J, et al. Distinct roles of two myosins in C. elegans spermatid differentiation. PLoS Biol. 2019;17(4):e3000211.
- Kovacevic I, Orozco JM, Cram EJ. Filamin and phospholipase C-ε are required for calcium signaling in the Caenorhabditis elegans spermatheca. PLoS Genet. 2013;9(5):e1003510.
- Sadeghian F, Grooms NWF, Chung SH, Cram EJ. Tensions on the actin cytoskeleton and apical cell junctions in the C. elegans spermatheca are influenced by spermathecal anatomy, ovulation state and activation of myosin. Front Cell Dev Biol. 2024;12:1490803.
- Hoege C, Hyman AA. Principles of PAR polarity in Caenorhabditis elegans embryos. Nat Rev Mol Cell Biol. 2013;14(5):315-22.
- Simske JS, Hardin J. Getting into shape: epidermal morphogenesis in Caenorhabditis elegans embryos. Bioessays. 2001;23(1):12-23.
- Zhang H, Emmons SW. Regulation of the Caenorhabditis elegans posterior hox gene egl-5 by microRNA and the polycomb-like gene sop-2. Dev Dyn. 2009;238(3):595-603.
- Zhang N, et al. The C. elegans intestine as a model for intercellular lumen morphogenesis and in vivo polarized membrane biogenesis at the single-cell level: labeling by antibody staining, RNAi loss-of-function analysis and imaging. J Vis Exp. 2017;(128):e56100.
- Zhang N, et al. The C. elegans excretory canal as a model for intracellular lumen morphogenesis and in vivo polarized membrane biogenesis in a single cell: labeling by GFP-fusions, RNAi interaction screen and imaging. J Vis Exp. 2017;(128):e56101.
- Cui M, et al. A model of hereditary sensory and autonomic neuropathy type 1 reveals a role of glycosphingolipids in neuronal polarity. J Neurosci. 2019;39(29):5816-34.
- Li Z, et al. A collection of toolkit strains reveals distinct localization and dynamics of membrane-associated transcripts in epithelia. Cell Rep. 2021;35(5):109072.
- Cheng X, et al. Proteotoxic stress disrupts epithelial integrity by inducing MTOR sequestration and autophagy overactivation. Autophagy. 2022;19(1):241-55.
- Zhang P, et al. The centralspindlin complex regulates cytokinesis and morphogenesis in the C. elegans spermatheca. Development. 2023;150(2):dev200840.
- Wang YL, Grooms NWF, Civale SC, Chung SH. Confocal imaging capacity on a widefield microscope using a spatial light modulator. PLoS One. 2021;16(2):e0244034.
- Stiernagle T. Maintenance of C. elegans. WormBook. 2006;1-11.
- Hirsh D, Vanderslice R. Temperature-sensitive developmental mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):220-35.
- Davies T, et al. Using fast-acting temperature-sensitive mutants to study cell division in Caenorhabditis elegans. Methods Cell Biol. 2017;137:283-306.
- Ward S, Miwa J. Characterization of temperature-sensitive, fertilization-defective mutants of the nematode Caenorhabditis elegans. Genetics. 1978;88(2):285-303.
- Vanderslice R, Hirsh D. Temperature-sensitive zygote defective mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):236-49.
- Fujita M, Onami S. Cell-to-cell heterogeneity in cortical tension specifies curvature of contact surfaces in Caenorhabditis elegans embryos. PLoS One. 2012;7(1):e30224.
- Nishikawa M, Naganathan SR, Jülicher F, Grill SW. Controlling contractile instabilities in the actomyosin cortex. eLife. 2017;6:e19595.
- Kimble J, Hirsh D. The postembryonic cell lineages of the hermaphrodite and male gonads in Caenorhabditis elegans. Dev Biol. 1979;70(2):396-417.
- Onuaguluchi G, Igbo IN. Comparative local anaesthetic and antiarrhythmic actions of levamisole hydrochloride and lignocaine hydrochloride. Arch Int Pharmacodyn Ther. 1987;289(2):278-89.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Weisbart E, et al. CellProfiler plugins - an easy image analysis platform integration for containers and Python tools. J Microsc. 2024;296(3):227-34.
- Rueckl M, et al. SamuROI, a Python-based software tool for visualization and analysis of dynamic time series imaging at multiple spatial scales. Front Neuroinform. 2017;11:44.
- Kachur TM, Audhya A, Pilgrim DB. UNC-45 is required for NMY-2 contractile function in early embryonic polarity establishment and germline cellularization in C. elegans. Dev Biol. 2008;314(2):287-99.
- Schmutz C, Stevens J, Spang A. Functions of the novel RhoGAP proteins RGA-3 and RGA-4 in the germ line and in the early embryo of C. elegans. Development. 2007;134(19):3495-505.
- Chartier NT, et al. PAR-4/LKB1 mobilizes nonmuscle myosin through anillin to regulate C. elegans embryonic polarization and cytokinesis. Curr Biol. 2011;21(4):259-69.
- Knight AJ, Johnson NM, Behm CA. VHA-19 is essential in Caenorhabditis elegans oocytes for embryogenesis and is involved in trafficking in oocytes. PLoS One. 2012;7(7):e40317.
- Murata D, et al. GPI-anchor synthesis is indispensable for the germline development of the nematode Caenorhabditis elegans. Mol Biol Cell. 2012;23(6):982-95.
- Wong S, Weisman LS. Roles and regulation of myosin V interaction with cargo. Adv Biol Regul. 2021;79:100787.
- McLean D. Adobe Photoshop and Illustrator techniques. J Audiov Media Med. 2002;25(2):79-81.
- Gabel CV, et al. Neural circuits mediate electrosensory behavior in Caenorhabditis elegans. J Neurosci. 2007;27(28):7586-96.
- Chung SH, Sun L, Gabel CV. In vivo neuronal calcium imaging in C. elegans. J Vis Exp. 2013;(74):50357.
- McCarter J, Bartlett B, Dang T, Schedl T. On the control of oocyte meiotic maturation and ovulation in Caenorhabditis elegans. Dev Biol. 1999;205(1):111-28.
- L’Hernault SW. Spermatogenesis. WormBook. 2006;1-14.
- Pitayu-Nugroho L, et al. Kinetochore component function in C. elegans oocytes revealed by 4D tracking of holocentric chromosomes. Nat Commun. 2023;14(1):4032.
- Wang YL, et al. High-throughput submicron-resolution microscopy of Caenorhabditis elegans populations under strong immobilization by cooling cultivation plates. iScience. 2023;26(2):105999.
- Chung SH, et al. The role of the AFD neuron in C. elegans thermotaxis analyzed using femtosecond laser ablation. BMC Neurosci. 2006;7(1):30.
- Chung S, Maxwell I, Mazur E. Subcellular surgery and nanoneurosurgery [conference paper]. Presented at: Conference on Lasers and Electro-Optics; Baltimore, MD; 2007. p. 1-2.
- Chung SH, Mazur E. Femtosecond laser ablation of neurons in C. elegans for behavioral studies. Appl Phys A Mater Sci Process. 2009;96(2):335-41.
- Chung SH, Mazur E. Surgical applications of femtosecond lasers. J Biophotonics. 2009;2(10):557-72.
- Cai H, et al. Wedge prism approach for simultaneous multichannel microscopy. Sci Rep. 2019;9(1):17795.
- Chung SH, et al. Novel DLK-independent neuronal regeneration in Caenorhabditis elegans shares links with activity-dependent ectopic outgrowth. Proc Natl Acad Sci U S A. 2016;113(20):E2852-60.
- Grooms NWF, et al. Expression of thioredoxin-1 in the ASJ neuron corresponds with and enhances intrinsic regenerative capacity under lesion conditioning in C. elegans. FEBS Lett. 2023;597(14):1880-93.
- Wang YL, et al. Widefield targeted illumination microscopy enables optically-sectioned, motion-resilient imaging of neuronal fibers and their dynamics. Laser Photon Rev. 2025;19(24):e01980.
- Ghaemi R, Rezai P, Nejad FR, Selvaganapathy PR. Characterization of microfluidic clamps for immobilizing and imaging of Drosophila melanogaster larva’s central nervous system. Biomicrofluidics. 2017;11(3):034113.
- Bauer B, Mally A, Liedtke D. Zebrafish embryos and larvae as alternative animal models for toxicity testing. Int J Mol Sci. 2021;22(24):13417.
- Ho VWS, et al. Systems-level quantification of division timing reveals a common genetic architecture controlling asynchrony and fate asymmetry. Mol Syst Biol. 2015;11(6):MSB145857.
- Packer JS, et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 2019;365(6459):eaax1971.
- Bao Z, et al. Automated cell lineage tracing in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 2006;103(8):2707-12.
- Katzman B, Tang D, Santella A, Bao Z. AceTree: a major update and case study in the long term maintenance of open-source scientific software. BMC Bioinform. 2018;19(1):121.
- Cao J, et al. Establishment of a morphological atlas of the Caenorhabditis elegans embryo using deep-learning-based 4D segmentation. Nat Commun. 2020;11(1):6254.
- Guan G, et al. Cell lineage-resolved embryonic morphological map reveals signaling associated with cell fate and size asymmetry. Nat Commun. 2025;16(1):3700.
- Guan G, et al. EmbSAM: cell boundary localization and Segment Anything Model for fast images of developing embryos. Commun Biol. 2026;9(1):8.
- Goehring NW, et al. Polarization of PAR proteins by advective triggering of a pattern-forming system. Science. 2011;334(6059):1137-41.
- Zhang H, et al. Vesicular sorting controls the polarity of expanding membranes in the C. elegans intestine. Worm. 2013;2(1):e23702.
- Zhang H, et al. Clathrin and AP-1 regulate apical polarity and lumen formation during C. elegans tubulogenesis. Development. 2012;139(11):2071-83.
- Kajita A, Yamamura M, Kohara Y. Computer simulation of the cellular arrangement using physical model in early cleavage of the nematode Caenorhabditis elegans. Bioinformatics. 2003;19(6):704-16.
- Zhang H, et al. Apicobasal domain identities of expanding tubular membranes depend on glycosphingolipid biosynthesis. Nat Cell Biol. 2011;13(10):1189-201.
- Pimpale LG, Middelkoop TC, Mietke A, Grill SW. Cell lineage-dependent chiral actomyosin flows drive cellular rearrangements in early Caenorhabditis elegans development. eLife. 2020;9:e54930.
- Hench J, Henriksson J, Lüppert M, Bürglin TR. Spatio-temporal reference model of Caenorhabditis elegans embryogenesis with cell contact maps. Dev Biol. 2009;333(1):1-13.
- Richards JL, et al. A quantitative model of normal Caenorhabditis elegans embryogenesis and its disruption after stress. Dev Biol. 2013;374(1):12-23.
- Moore JL, Du Z, Bao Z. Systematic quantification of developmental phenotypes at single-cell resolution during embryogenesis. Development. 2013;140(15):3266-74.
- Wong MK, et al. Timing of tissue-specific cell division requires a differential onset of zygotic transcription during metazoan embryogenesis. J Biol Chem. 2016;291(24):12501-13.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב