ניתוחים משולבים של מטבולומיקה, טרנסקריפטומיקה, רמת התא הבודד וניתוחים פונקציונליים מזהים את SHMT2 כסמן ביולוגי של תכווץ מטבולי של SGOC, התנהגות אגרסיבית וירידה בתגובה החזויה לאימונותרפיה באדנוקרצינומה של הריאה.
מאמר מחקר
SHMT2: סמן ביולוגי מטבולי וחיסוני של אדנוקרצינומה אגרסיבית של הריאה
* These authors contributed equally
במאמר זה
סיכום
תקציר
מטבוליזם של סרין/גליצין-פחמן-אחד (SGOC) משתנה לעיתים קרובות באדנוקרצינומה של הריאה (LUAD), אך הקשר שלו להתנהגות הגידול ולתגובה החזויה לאימונותרפיה נותר לא מוגדר במלואו. פרופיל מטבולומי של 23 זוגות של רקמות LUAD ורקמות ריאה נורמליות סמוכות בוצע באמצעות ספקטרומטריית מסות עם יינון בריסוס אלקטרוסטטי חילוצי פנימי. נתונים טרנסקריפטומיים וקליניים מקוהורט LUAD של The Cancer Genome Atlas (TCGA-LUAD) נותחו כדי להעריך את ביטוי SHMT2, את הפרוגנוזה, גנים בעלי ביטוי Differentially Expressed ומאפיינים הקשורים למערכת החיסון. תגובה חזויה לחסימת נקודות בקרה חיסוניות הוערכה באמצעות Tumor Immune Dysfunction and Exclusion (TIDE) ו-The Cancer Immunome Atlas (TCIA), ורגישות לתרופות הוסקה באמצעות oncoPredict. נתוני Single-cell RNA-seq שימשו לבחינת ההפצה התאית של SHMT2. תיקוף ניסויי כלל PCR עם שעתוק הפוך כמותי (RT-qPCR), Western blotting, אימונוהיסטוכימיה של Human Protein Atlas (HPA), והשתקת SHMT2 באמצעות RNA בעלת לולאה קצרה (shRNA), ולאחריהם בדיקות פרוליפרציה, ריפוי פצעים ויצירת מושבות. ניתוח מטבולומי זיהה את מטבוליזם הגליצין, הסרין והתראונין כמסלול שמשתנה באופן בולט ב-LUAD. SHMT2 היה בעל ביטוי מוגבר (upregulated) ב-LUAD והיה קשור להישרדות כללית גרועה יותר ומאפיינים קליניקופתולוגיים שליליים. גידולי SHMT2-high הראו העשרה של תוכניות שעתוק הקשורות למחזור התא ול-SGOC, ציוני חיסון וסטרומה נמוכים יותר, ותגובה חזויה מופחתת לאימונותרפיה. ניתוח תאים בודדים הראה העשרה יחסית של ביטוי SHMT2 באוכלוסיות של תאי B. In vitro, SHMT2 היה בביטוי יתר בתאי LUAD, והש탁קתו דיכאה פרוליפרציה, נדידה וצמיחה קלונוגנית. יחד, SHMT2 קשור לתכנון מחדש מטבולי של SGOC, לפנוטיפים גידוליים אגרסיביים ולמצב של נחיתות חיסונית ב-LUAD, מה שתומך ברלוונטיות הפוטנציאלית שלו כסמן ביולוגי; טיפול תרפויטי דורש תיקוף פרמקולוגי ו-in vivo נוסף.
מבוא
LUAD נותר גורם מוביל לתמותה הקשורה לסרטן ברחבי העולם, בשל הטרוגניות מולקולרית ניכרת, נטייה מוקדמת למטסטזיס ועמידות מוגבלת של אסטרטגיות הטיפול הנוכחיות1,2. למרות שמעכבי נקודות בקרה חיסוניות (ICIs) עיצבו מחדש את הנוף הטיפולי של LUAD, תועלת קלינית מתמשכת מוגבלת לתת-קבוצה של חולים, ועמידות ראשונית ונרכשת נצפית תכוף3,4. שונות בולטת זו בין חולים מדגישה את הצורך הדחוף להגדיר את הגורמים הביולוגיים המעצבים את המיקרו-סביבה החיסונית של הגידול והשולטים בתגובה לאימונותרפיה, תוך זיהוי נקודות תורפה הניתנות לניצול כדי לשפר את סטרטיפיקציית החולים ואת תוצאות הטיפול.
תכנות מחדש מטבולי הוא סימן היכר מרכזי של התקדמות ממאירה5. בין התוכניות המטבוליות, מטבוליזם של SGOC מקשר בין תשומות גליקוליטיות למטבוליזם של חומצות אמינו וסינתזת נוקלאוטידים, ובכך מספק יחידות פחמן אחת לייצור פורינים/פירימידינים וליצירת תורמי מתיל6. מעבר לייצור ביומסה, מטבוליזם של SGOC תורם להומיאוסטזיס של רדוקס ומתממשק עם מחזור המתיונין כדי להשפיע על מתילציה של DNA, RNA והיסטונים, ובכך הוא ממוקם בצומת שבין ת proliferation (שגשוג תאים) לבקרה אפיגנטית7,8. Serine hydroxymethyltransferase 2 (SHMT2), האיזופורמה המיטוכונדריאלית של serine hydroxymethyltransferase, ממירה סרין לגליצין תוך써 יצירת 5,10-methylene-tetrahydrofolate, ומהווה נקודת כניסה מרכזית לאספקת פחמן אחד במיטוכונדריה בתוך רשת ה-SGOC9. SHMT2 מועלה באופן חריג במספר סוגי גידולים ממאירים והוא נקשר להגברת proliferation, פלישה, עמידות טיפולית והסתגלות לעקה חמצונית10,11,12,13. SHMT2 מתממשק גם עם סיגנל דלקתי באמצעות קומפלקס BRISC, אם כי מנגנון חיסוני ישיר המונע על ידי SHMT2 ב-LUAD עדיין לא הוכח14,15. לפיכך, השאלה האם SHMT2 מסמן פנוטיפ מטבולי בעל משמעות קלינית ב-LUAD וכיצד הוא קשור למאפייני מיקרו-סביבה חיסונית ותגובה חזויה לאימונותרפיה, דורשת הערכה משולבת.
היחסיים הדו-כיווניים בין חילוף החומרים של הגידול לבין החסינות נגד הגידול הם מרכזיים בביולוגיה של הסרטן כיום16. תאי גידול עלולים לפגוע ביכולת החיסונית באמצעות הת depletion תחרותי של רכיבים תזונתיים, הצטברות של מטבוליטים מווסתים-חיסוניים, וצימוד מטבולי-אפיגנטי המשנה את תכניות הבידול והתפקוד של תאי מערכת החיסון7,16,17. חילוף חומרים מוגבר של פחמן אחד עשוי להשפיע על תכניות תלויות-מתילציה ועל הכשירות המטבולית של תאי T, אך הכיוון ועוצמתם של השפעות אלו תלויים בסוג התא ובהקשר התזונתי17. הבקרה החיסונית האדפטיבית חורגת גם מעבר לתאי T: תאי B, תגובות נוגדנים, הצגת אנטיגן ומבנים לימפואידיים שלישוניים (TLS) נמצאו קשורים ליעילות של אימונותרפיה18. תצפיות אלו מניעות ניתוח רב-שכבתי שיכול להציב מועמד מטבולי בתוך הקשרים של גידול כולל (bulk-tumor), רמה של תא בודד והקשרים תפקודיים, מבלי להניח שסמינות בין פלטפורמות שונות מוכיחה כשלעצמה סיבתיות.
בניגוד לתכנון המבוסס על מטבוליזניקה בלבד, המזהה מטבוליטים ששונו ללא קביעת מקורם התאי או רלוונטיות פנוטיפית, ובניגוד לתכנון המבוסס על טרנסקריפטומיקה של תאי מאס (bulk-transcriptomics) בלבד, שעשוי להסיק על פעילות של מסלולים ללא תצפית ישירה על שינויים במטבוליטים, תהליך העבודה הנוכחי משלב מטבוליזניקה של רקמות זוגיות, טרנסקריפטומיקה של תאי מאס ושל תאים בודדים, ובדיקות תפקודיות in vitro. התאמה בין שכבות אלו תומכת בתעדוף מועמדים ומפחיתה את התלות בפלטפורמה אנליטית בודדת; עם זאת, הראיות המתקבלות נותרות אסוציאטיביות עבור ויסות חיסוני, אלא אם כן הן תוקפו במערכות של קו-קלטור חיסוני או in vivo.
מטבולומיקה של רקמות מזווגות של LUAD וריאה נורמלית סמוכה שימשה תחילה כדי לזהות שיבושים מטבוליים הקשורים לגליצין. לאחר מכן שולבו נתונים טרנסקריפטומיים וקליניים מ-TCGA כדי להעריך את SHMT2, אנזים SGOC מיטוכונדרי שנתמך על ידי רלוונטיות של מסלול, ביטוי מוגבר בגידול, קשר פרוגנוסטי וישימות ניסיונית. פרופיל של הסביבה המיקרו-אימונית, מיפוי של תאים בודדים ותיקוף תפקודי in vitro ביססו לאחר מכן מסגרת רב-שכבתית להגדרת היפותזות, המקיפה שינויים מטבוליים, הפרעה בוויסות אנזימטי, התפלגות תאית ופנוטיפ של תאי גידול. מנקודת מבט מעשית, זרימת עבודה זו דורשת רקמות מזווגות שהוקפאו במיKד. זיהוי מטבוליטים באמצעות ספקטרומטריית מסות הוא חצי-כמותי; יש לתקף מטבוליטים מועמדים באופן עצמאי. תחזיות לאימונותרפיה (TIDE/TCIA) והסקות לגבי רגישות לתרופות (oncoPredict) הן הערכות חישוביות מבוססות טרנסקריפטום שאינן מחליפות תיקוף קליני בחלקה של קהלי מטופלים המטופלים ב-ICI בעולם האמיתי, ויש לפרשן ככלי להגדרת היפותזות.
פרוטוקול
מחקר זה אושר על ידי ועדת ההגנה על נסייני אדם (IRB) של בית החולים השני המסונף לאוניברסיטת נאנצ'אנג (CDEFYYLK 3-05). הסכמה מדעת בכתב התקבלה מכל המטופלים לפני איסוף הדגימות, בהתאם להצהרת הלסינקי. נתונים גולמיים יוצאו ונותחו באמצעות התוכנה ומשאבי הרשת המפורטים ב- טבלת חומרים.
איסוף רקמה קלינית
דגימות זוגיות של גידול ורקמות ריאה נורמליות תואמות מאזורים מרוחקים נאספו מחולים שעברו כריתה כירורגית בין ינואר ליוני 2024 ואובחנו פתולוגית עם אדנוקרצינומה פולשנית של הריאה. הדגימות הוצאו על ידי המנתח המבצע, עובדו תוך 5 דקות מהכריתה, הוקפאו מיד בהקפאה מהירה בחנקן נוזלי ואוחסנו עד לניתוח. מאפיינים קליניקופתולוגיים ללא זיהוי מסופקים ב-טבלה משלימה 1.
ספקטרומטריית מסה עם יינון תרסוסי חשמליים עם מיצוי פנימי (iEESI-MS) להבחנה בין LUAD לבין רקמות ריאה נורמליות
דגימות רקמה (1 mm3) נותחו באמצעות iEESI-MS בעזרת ספקטרומטר מסות היברידי מסוג linear ion trap-electrostatic orbital-trap במצב יונים חיוביים. ממס חילוץ מתנול (100%) הוגש בקצב של 3.0 µL/min עם bias של +5 kV. טווח הסריקה של iEESI-MS1 היה m/z 50–2,000. ב-iEESI-MS2 נעשה שימוש בדיסוציאציה השרהת התנגשויות (collision-induced dissociation) עם אנרגיית התנגשות מנורמלת של 25–35%, חלון בידוד של m/z 2.0, וזמן החרגה דינמי של 30 s. כיול חיצוני יומי לפי פרוטוקול הסטנדרט של המכשיר שמר על שגיאת מסה של <5 ppm. לאחר נורמליזציה של חציונים, טרנספורמציית log₂ ו-autoscaling, בוצע OPLS-DA עם 200 מבחני פרמוטציה. מטבוליטים זוהו באמצעות HMDB, והסריקה של העשרת מסלולים (pathway enrichment) בוצעה באמצעות הערות KEGG.
עיבוד נתוני ספקטרומטריית מסות וזיהוי מטבוליטים
נתוני MS גולמיים נורמלו באמצעות נורמליזציית חציונית (median normalization), ולאחריה ביצוע לוגריתם (log)₂ טרנספורמציה ונרמול אוטומטי (מרכוז ממוצע וחילוק בסטיית התקן של כל משתנה). ניתוח מבדיל של ריבועי מזעורים פחותים חלקיים אורתוגונליים (OPLS-DA) שימש לזיהוי מאפייני m/z מבדילים. מאפיינים נחשבו לדיפרנציאליים כאשר ה-VIP > 1.0, |log₂(FC)| > 0.58, ו- p < 0.05. מאפיינים דיפרנציאליים הועברו לבדיקת MS2 ניתוח והערות באמצעות מאגר המטבוליזם האנושי (Human Metabolome Database). לאחר מכן, נעשה שימוש בהעשרה של מסלולים מבוססת KEGG כדי לזהות מסלולים ששונו ולתעדף אנזימים רלוונטיים למסלולים אלו. המטבוליטים הדיפרנציאליים המannotated מופיעים ב- טבלה נלווית 2.
ניתוחי ביטוי של SHMT2, הישרדות וקשר קליני-פתולוגי המבוססים על TCGA
פרופילי ביטוי של RNA-seq ואנוטציות קליניות תואמות עבור TCGA-LUAD הורדו מ-Genomic Data Commons ב-18 בדצמבר 2025; גידולים (n = 542) ודגימות נורמליות (n = 59). ערכי Fragments per kilobase of transcript per million mapped reads (FPKM) הומרו ל-log2(FPKM + 1). רק דגימות עם מידע מלא על הישרדות נכללו בניתוחים הפרוגנוסטיים. ערכי ביטוי של SHMT2 בגידולים ובדגימות נורמליות הושוו באמצעות מבחן Wilcoxon rank-sum. המטופלים חולקו לקבוצות של SHMT2-high ו-SHMT2-low לפי ערך הביטוי החציוני. הישרדות כללית הוערכה באמצעות ניתוח Kaplan-Meier ומבחן log-rank. קשרים עם שלב tumor-node-metastasis (TNM), גיל ומגדר נבחנו באמצעות מבחני chi-square או Wilcoxon, לפי העניין. עקומות receiver operating characteristic (ROC) תלויות-זמן הופקו עבור הישרדות של שנה אחת, 3 שנים ו-5 שנים. כל המבחנים הסטטיסטיים היו דו-זנביים.
ניתוח ביטוי דיפרנציאלי והעשרה תפקודית (GO/KEGG)
גנים עם ביטוי דיפרנציאלי (DEGs) בין קבוצות עם ביטוי גבוה של SHMT2 לביטוי נמוך של SHMT2 זוהו באמצעות שימוש בשיעור גילוי שגוי (false-discovery rate) < 0.05 ו- |log₂(FC)| ≥ 1. התוצאות הוצגו כתרשים געש (volcano plot) וכמפת חום (heatmap) של 40 ה-DEGs המובילים עם נורמליזציית z-score לפי שורות. ניתוחי העשרה של Gene Ontology (GO) ו-KEGG השתמשו ב-p < 0.05 מתוקנן. אנוטציות של גנים אנושיים התקבלו מ-Ensembl בדצמבר 2025.
חדירה חיסונית, חיזוי תגובה לאימונותרפיה והסקת רגישות לתרופות
מדדי סביבת הגידול המיקרוסקופית (Tumor-microenvironment scores), כולל ImmuneScore, StromalScore ו-ESTIMATEScore, חושבו באמצעות ESTIMATE. הרכב תאי החיסון הוסק באמצעות CIBERSORT עם סט הייחוס LM22 (הורד ב-5 בדצמבר 2025), 1,000 פרמוטציות, ושימור דגימות עם p < 0.05 בדקונבולוציה. השוואות בין קבוצות בוצעו בין גידולים עם ביטוי גבוה של SHMT2 לבין גידולים עם ביטוי נמוך של SHMT2. מתאמי Spearman בין SHMT2 לגנים הקשורים לנקודות בקרה חיסוניות הוצגו כמעטריצת מתאמים. Immunophenoscores הופקו מ-TCIA, ו-TIDE שימש לחיזוי משלים של התגובה לאימונותרפיה. רגישות לתרופות הוסקה באמצעות oncoPredict שאומן על גרסת GDSC מדצמבר 2023 להערכת ערכי IC50. להבדלים בין קבוצות נעשה שימוש במבחני Wilcoxon, ועבור קשרים רציפים נעשה שימוש במתאמי Spearman.
ניתוח scRNA-seq של LUAD
נתוני טרנסקריפטומיקה של תא בודד19 הורדו ממאגר ה-Gene Expression Omnibus ב-20 בדצמבר 2025 ונותחו. תאים עם 200–6,000 מאפיינים (features) שזוהו ו- < 10% מתמלילי המיטוכונדריה נשמרו. ספירות נורמלו באמצעות LogNormalize עם מקדם קנה מידה של 10,000; נבחרו 2,000 הגנים המשתנים הבולטים ביותר, וכל הגנים עברו סקלינג (scaling). בניתוח רכיבים עיקריים (PCA) נעשה שימוש ב-20 הרכיבים הראשונים, ב-UMAP נעשה שימוש בממדים 1–20, ובקיבוץ (clustering) נעשה שימוש ברזולוציה של 0.5. סוגי התאים סווגו באמצעות התייחדות לאטלס תאי האדם הראשוניים (Human Primary Cell Atlas). פרופורציות של סוגי תאים הושוו בין דגימות גידול לדגימות נורמליות, ונוצרו מטריצות של מתאם ספירמן. התפלגויות של SHMT2 נבחנו על פני סוגי התאים המסווגים. מצבי מחזור התא הוסקו באמצעות cyclone והוצגו באמצעות גרפי רכס (ridge plots).
תרבית תאים
תאי BEAS-2B, H1299 ו-A549 תורבדו ב- 37 °C באינקובטור לח(Humidified incubator) המוגדר ל-5% CO22 ולחות יחסית של כ-95%, תוך שימוש במצעים ובתוספים המפורטים ב- טבלת חומרים.
PCR כמותי בזמן אמת עם שעתוק הפוך (RT-qPCR)
RNA כולל הוצא מהתאים באמצעות ריאגנט להפקת RNA מבוסס פנול. ה-RNA שהופק עבר תמלול הפוך ל-cDNA באמצעות תערובת מאסטר לתמלול הפוך. התמלול ההפוך בוצע במערכת של 20 µL עם הסרה של DNA גנומי ב-42 °C למשך 2 min, תמלול הפוך ב-50 °C למשך 15 min, וסיום התגובה ב-85 °C למשך 5 s. PCR כמותי בוצע עם תערובת מאסטר ל-qPCR המבוססת על צבע נקשר ל-DNA במערכת real-time PCR, תוך שימוש ב-95 °C למשך 3 min, ולאחר מכן 40 מחזורים של 95 °C למשך 10 s ו-60 °C למשך 30 s, ושלב עקומת התכה של 95 °C למשך 15 s, 60 °C למשך 60 s, ו-95 °C למשך 15 s. כל התגובות בוצעו בשלישייה. ביטוי יחסי חושב באמצעות שיטת 2−ΔΔCt כאשר GAPDH שימש כגן הבית. תמיסות מלאי של פריימרים הוכנו בריכוז של 10 µM במים מזוקקים פעמיים ונשמרו ב-20 °C- בחושך. רצפי הפריימרים מופיעים ב-Supplementary Table 3.
Western blotting
חלבון תאי כולל חולץ באמצעות בופר radioimmunoprecipitation assay על קרח למשך 30 min, וסבב בצנטריפוגה במהירות 12,000 x g למשך 15 min בטמפרטורה של 4 °C. חלבונים הופרדו בשיטת 12% sodium dodecyl sulfate-polyacrylamide gel electrophoresis והועברו לממברנות polyvinylidene fluoride בנחירות של 0.22 µm. הממברנות נחסמו עם 5% (w/v) חלב דל שומן ב-Tris-buffered saline עם 0.1% Tween 20 (TBST) למשך 2 h בטמפרטורת החדר והודגרו למשך הלילה ב-4 °C עם נוגדנים ראשוניים anti-SHMT2 (1:1,000) ו-anti-GAPDH (1:2,000) המדוללים ב-5% חלב דל שומן‑TBST. לאחר שלושה שטיפות של 8 min כל אחת עם TBST (20 mM Tris-HCl, 150 mM NaCl, 0.1% Tween-20), הודגרו הממברנות עם נוגדנים משניים המצומדים ל-horseradish-peroxidase (1:5,000) למשך 1 h בטמפרטורת החדר. האותות פותחו באמצעות תסבסיר enhanced chemiluminescence שהוכן מערבוב של נפחים שווים של תמיסות A ו-B, הודגרו למשך 2 min בטמפרטורת החדר בחשכה, ונלכדו באמצעות מערכת דימוי chemiluminescence.
תיקוף אימונוהיסטוכימיה של HPA
דפוסי הביטוי של חלבון SHMT2 ברקמת ריאה נורמלית וב-LUAD הוערכו באמצעות ה-HPA. בוצעה שאילתה עבור "SHMT2" ב-HPA, ותמונות אימונוהיסטוכימיה (IHC) מייצגות והערות פתולוגיות נלוות הורדו לצורך השוואה. כדי למזער הטיות הנובעות מסגפיות נוגדנים, הועדפה עדיפות לנוגדנים עם רמות תיקוף גבוהות יותר ב-HPA. במידת האפשר, תוצאות IHC ממספר נוגדנים הושוו באופן הצלבה (HPA020543 ו-HPA020549).
השתקה של SHMT2 בתאי LUAD
כדי לבחון את התפקיד הפנימי של SHMT2 בתאי גידול ב-LUAD, בוצע knockdown של SHMT2 בתאי H1299 ו-A549 באמצעות shRNA. ה-shRNA נשא על ידי וקטור לנטיוויראלי עם פרומוטר H1 וברירה באמצעות puromycin; פלסמידים לאריזה הועברו בטרנספקציה משותפת במהלך ייצור הווירוס. sh-SHMT2 כוון לאזור המקודד של SHMT2 האנושי, בעוד ש-sh-NC שימש כביקורת שלילית (scrambled). למלאים הווירוסליים שהוכנו היה titer של ≥ 1 x 10⁸ יחידות טרנסדוקציה/mL והם נשמרו ב-80 °C-. התאים הוחדרו עם חלקיקים לנטיוויראליים של sh-SHMT2 או sh-NC כפי שמתואר בטבלת החומרים. לאחר 48 שעות, יעילות ה-knockdown נבחנה באמצעות RT-qPCR ו-western blotting. רק תאים עם השתקה מאושרת של SHMT2 שימשו לבדיקות של פרוליפרציה, נדידה ויצירת מושבות.
בדיקת ת proliferation של תאים
שגשוג תאים הוערך באמצעות מבחן CCK-8. תאי H1299 ו-A549 שעברו טרנספקציה נזרעו בלוחות בעלי 96 בארות בריכוז של 5 x 10³ תאים לכל באר בשש חזרות. בימים 1, 2, 3, 4 ו-5, 10 µL של ריאגנט CCK-8 הוסף לכל באר (10% מנפח מדיום התרבית) ודגרו למשך שעתיים ב- 37 °Cנמדדה בליעה באורך גל של 450 ננומטר, והיא שימשה כמדד לחיוניות התאים.
בדיקת ריפוי פצעים
נדידת תאים הוערכה באמצעות בדיקת ריפוי פצע (wound-healing assay). תאי H1299 ו-A549 שעברו טרנספקציה נזרעו לפלטות בעלות 6 בארות והגודלו עד להגעה ל-90–95% התמגשות (confluence). פצע ליניארי נוצר באמצעות טיפ פחית של פפיטה סטרילית בנפח 200 µL, ותאים שנותקו הוסרו באמצעות שטיפה עדינה ב-phosphate-buffered saline. לאחר מכן, התאים הוחזקו במדיום ללא סרום או עם ריכוז סרום נמוך, ואזור הפצע צולם ב-0 h וב-24 h תחת מיקרוסקופ הפוך. סגירת הפצע נמדדה כמותית באמצעות תוכנת ניתוח התמונות המפורטת בטבלת החומרים, וחושבה כאחוז ההפחתה ביחס לשטח הפצע הראשוני.
בדיקת יצירת מושבות
לניתוח יצירת מושבות, תאי H1299 ו-A549 שעברו טרנספקציה נזרעו לפלטות של 6 בארות בריכוז של 800 תאים לבערה וגודלו במשך כ-10–14 ימים עד להיווצרות מושבות נראות לעין, תוך ניטור מיקרוסקופי במהלך התרבית. המושבות קובעו ב-4% paraformaldehyde למשך 30 דקות בטמפרטורת החדר ונצבעו ב-0.1% crystal violet למשך 15 דקות בטמפרטורת החדר. מושבות המכילות יותר מ-50 תאים נספרו תחת מיקרוסקופ אור.
ניתוח סטטיסטי עבור ניסויי in vitro
כל הניסויים in vitro בוצעו באופן עצמאי לפחות שלוש פעמים. הנתונים מוצגים כממוצע ± סטיית תקנית. להשוואות בין שתי קבוצות נעשה שימוש במבחן t של Student, וערך p < 0.05 נחשב למשמעותי סטטיסטית.
תוצאות
מטבולינומיקה של רקמות חושפת עיצוב מחדש מטבולי נרחב ב-LUAD עם העשרה בולטת של מסלולים הקשורים לגליצין
רקמות גידול ורקמות ריאה נורמליות סמוכות מזווגות מ-23 חולים עם LUAD נסרקו באמצעות iEESI-MS ישיר; מאפייני החולים ואנוטציות של מטבוליטים דיפרנציאליים מופיעים ב-Supplementary Table 1 וב- Supplementary Table 2. לאחר נורמליזציית log2, ניתוח OPLS-DA הראה הפרדה ברורה בין הפרופילים המטבוליים של הגידול לאלו של הרקמה הנורמלית (R2X = 0.824, R2Y = 0.968, Q2 = 0.757) (Figure 1A). מהימנות המודל נתמכה עוד יותר על ידי בדיקת 200 פרמוטציות, עם נקודות חיתוך של R2 = 0.789 ו-Q2 = −0.451 (Figure 1B). באמצעות קריטריונים שהוגדרו מראש — חשיבות משתנה בהקרנה (VIP) > 1, |log2(FC)| > 0.58, ו- p < 0.05; זוהו 45 מאפייני m/z דיפרנציאליים (Figure 1C). רכישת MS/MS ואנוטציית HMDB הניבו שישה מטבוליטים אנדוגניים ששינו את רמתם, כולל glycine, serine ו-butanone (Supplementary Table 2). העשרה ב-KEGG זיהתה 11 מסלולים, כאשר מטבוליזם של glycine, serine ו-threonine היו בין הבולטים ביותר (Figure 1D), מה שמעיד על עיצוב מחדש מטבולי הקשור ל-glycine ב-LUAD.
TCGA-LUAD מאשר ביטוי יתר של SHMT2 בגידולים ומקשר ביטוי גבוה לפרוגנוזה גרועה
הג'ן SHMT2 תועדף על בסיס התלכדות של ארבעה קריטריונים: מיקומו הישיר בנקודת הכניסה המיטוכונדריאלית של חילוף החומרים של SGOC, עלייה מובהקת בביטוי הקשורה לגידולים ב-TCGA-LUAD, קשר להישרדות כללית והתאמה להפרעה ניסיונית. נתוני RNA-seq מ-TCGA-LUAD הראו ביטוי SHMT2 גבוה באופן מובהק בערכי log2(FPKM + 1) בגידולים בהשוואה לרקמות ריאה נורמליות (איור 2A). ניתוח קפלן-מייר (Kaplan–Meier) באמצעות נקודת חיתוך חציונית הראה כי ביטוי גבוה של SHMT2 היה קשור להישרדות כללית גרועה יותר (איור 2B). ניתוחים קליניקו-פתולוגיים גששים הצביעו עוד על קשרים לשלב הגידול ולמצב קשרי הלימפה (איור 2C), בעוד שניתוח ROC תלוי-זמן הניב ערכי AUC > 0.70 בטווח של 1, 3 ו-5 שנים (איור 2D).
גידולים עם ביטוי גבוה של SHMT2 מראים תוכניות שעתוק המועשרות בתהליכי התקדמות מחזור התא ובציר המטבולי SGOC
על מנת לאפיין תוכניות ביולוגיות הקשורות ל-SHMT2, גידולי TCGA-LUAD חולקו לפי ערך הביטוי החציוני של SHMT2 לקבוצות של SHMT2-high ו-SHMT2-low לפני ביצוע ניתוח ביטוי דיפרנציאלי (איור 3A). מפת חום של 40 הגנים בעלי הביטוי הדיפרנציאלי הגבוה ביותר הראתה דפוסי ביטוי מובחנים בין הקבוצות (איור 3B). העשרה של GO זיהתה התקדמות מחזור התא, הפרדת כרומוזומים וחלוקה מיטוטית (איור 3C), ובכך סיפקה את הבסיס האנליטי לתיאור פנוטיפ תעתוקי פרוליפרטיבי מסוג SHMT2-high. העשרה של KEGG הדגישה גם את חילוף החומרים של גליצין, סרין ותרניון (איור 3D), מה שמעיד על תעתוק מתואם הקשור ל-SGOC ולא על שינוי מבודד ב-SHMT2.
ביטוי גבוה של SHMT2 קשור למיקרו-סביבה עם חיסרון חיסוני, להערכה מופחתת של התועלת מהטיפול האימונותרפי, ולדפוסי רגישות שונים לתרופות
פרופיל של מיקרו-סביבת הגידול באמצעות ESTIMATE חשף ערכי ImmuneScore ו-StromalScore נמוכים יותר בקבוצת ה-SHMT2-high (p < 0.001) (איור 4A). דה-קונבולוציה באמצעות CIBERSORT הצביעה על פרופורציות נמוכות יותר של תאי B זיכרון, תאי T CD4 זיכרון במצב מנוחה, מונוציטים ותאי mast במצב מנוחה, לצד פראקציות גבוהות יותר של תאי T CD4 זיכרון מופעלים ותאי T follicular helper (איור 4B). ניתוח קורלציה זיהה גם קשרים חיוביים של SHMT2 עם BTLA, TNFSF15 ו-CD28 וקשרים שליליים עם CD160 ו-TNFSF14 (איור 4C). חיזוי משלים מבוסס טרנסקריפטום באמצעות TIDE ו-immunophenoscores שנגזרו מ-TCIA הצביעו על תועלת חזויה נמוכה יותר מאימונותרפיה בגידולי SHMT2-high (p < 0.05) (איור 4D). הערכות אלו לא נגזרו מקוהורט LUAD שטופל קלינית ולכן אינן מדגימות עמידות טיפולית בפועל.
רגישות לתרופות הוסקה באופן חישובי ולא נמדדה ניסויית. לגידולים עם רמות גבוהות של SHMT2 היו ערכי IC50 חזויים נמוכים יותר עבור מעכב של glycogen synthase kinase-3 ועבור selumetinib, אך רגישות חזויה נמוכה יותר ל-talazoparib ולמעכב PLK1 (איור 4E–H). רגישות חזויה מופחתת לתשעה חומרים נוספים, כולל cytarabine, irinotecan ו-palbociclib, מוצגת ב-איור משלים 1A–I. ממצאים אלו מהווים היפותזות מועמדות ואינם מבססים יעילות קלינית או פרמקולוגית.
ניתוח של תאים בודדים חושף הרכב תאי מובחן ב-LUAD ומזהה תאי B כאוכלוסייה הדומיננטית המבטאת SHMT2
כדי לבחון את ההתפלגות התאית של SHMT2 בתוך הסביבה המיקרומבנית של הגידול, נותחו נתוני RNA-seq של תא בודד מ-LUAD. צבירי UMAP זיהו תאי B, תאי אנדותל, תאים אפיתליאליים, תאי T ומדורי תאים מרכזיים אחרים (איור 5A). פרופורציות של סוגי תאים היו שונות בין הגידול לבין רקמות נורמליות סמוכות (איור 5B–C), ופרופורציות של תאי B ותאי T נמצאו במתאם חיובי (p < 0.001) (איור 5D). ביטוי של SHMT2 היה מועשר יחסית במדור תאי ה-B, אך היה ניתן לזיהויו גם בתאים אפיתליאליים (איור 5E). מכיוון שזיהוי תמלילים לבדו אינו קובע תפקוד תאי או סטטוס ממאיר, תוצאות אלו מפורשות כהיפותזת מיקום. התפקיד האינטרינזי של SHMT2 בתאי הגידול נבחן בנפרד בקווי תאים של LUAD.
ניתוח מחזור התא ברמת התא הבודד בוצע באמצעות חישוב ציונים מנורמלים לשלבי G1, S ו-G2/M על פני סוגי תאים שונים. ציוני G1 היו מרוכזים סביב אפס, בעוד שציוני S ו-G2/M הראו התפלגויות רחבות יותר (איור משלים 2) והטרוגניות ניכרת של סוגי התאים (איור 5Fממצאים אלה מעידים על הטרוגניות במצב הפרוליפרטיבי בתוך המיקרו-סביבה של LUAD, והם עולים בקנה אחד עם חתימות מחזור התא והמיטוזה שזוהו בניתוחי bulk GO/KEGG.
תיקוף ניסיוני מאשר ביטוי יתר של SHMT2 ומדגים כי השתקת SHMT2 מדכאת פנוטיפים ממאירים בתאי LUAD
כדי לתקף את הממצאים הביו-אינפורמטיים ולהעריך את התפקיד הפנימי של SHMT2 בתאי הגידול, נבדק תחילה הביטוי בתאי אפיתל ברונכיאליים נורמליים (BEAS-2B) ובקווי תאי LUAD (H1299 ו-A549), בהתאם לזיהויו בנתוני bulk TCGA ובתאי אפיתל בניתוח של תא בודד (איור 5E). RT-qPCR הראה רמות גבוהות יותר של mRNA של SHMT2 בתאי H1299 ו-A549 מאשר בתאי BEAS-2B (איור 6A), ו-western blotting אישר ביטוי חלבון גבוה יותר (איור 6B–C). תמונות אימונוהיסטוכימיה מייצגות מ-HPA הראו גם הן צביעה חזקה יותר של SHMT2 ב-LUAD מאשר ברקמות ריאה נורמליות (איור 6D). כדי לחקור לעומק את התפקיד הביולוגי של SHMT2 ב-LUAD, בוצע השתקה של SHMT2 בתאי H1299 ו-A549 באמצעות shRNA. ניתוח RT-qPCR אישר כי ביטוי ה-mRNA של SHMT2 הופחת באופן ניכר בקבוצות sh-SHMT2 בהשוואה לקבוצות sh-NC בשני קווי התאים (איור 6E). באופן עקבי, Western blotting הדגים הפלה אפקטיבית של ביטוי חלבון SHMT2 לאחר ה-knockdown (איור 6F–G).
בדיקות תפקודיות הראו כי השתקה (knockdown) של SHMT2 פגעה באופן משמעותי בפנוטיפ הממאיר של תאי LUAD. בדיקות CCK-8 גילויות כי השתקת SHMT2 עיכבה באופן ניכר את יכולת השגשוג של תאי H1299 ו-A549, כאשר ההבדל הפך למובהק יותר עם הזמן (איור 6H). בדיקות ריפוי פצע (Wound-healing assays) הראו עוד כי ת depletion של SHMT2 הפחיתה באופן משמעותי את יכולת הנדידה של שני קווי תאי ה-LUAD בהשוואה לתאי בקרה (איור 6I). באופן דומה, בדיקות יצירת מושבות הדגימו כי השתקת SHMT2 הפחיתה באופן משמעותי את הפוטנציאל הקלונוגני של תאי H1299 ו-A549 (איור 6J). יחד, ממצאים אלה מעידים כי SHMT2 מקדם את השגשוג, הנדידה ויכולת יצירת המושבות של תאי LUAD, ובכך תומך בתפקידו הפרו-טומוריגני ב-LUAD.
זמינות נתונים:
כל הנתונים הגולמיים התומכים בממצאי מחקר זה, כולל הנתונים העומדים בבסיס האיורים, זמינים לציבור ב-Zenodo בכתובת https://doi.org/10.5281/zenodo.20676134.
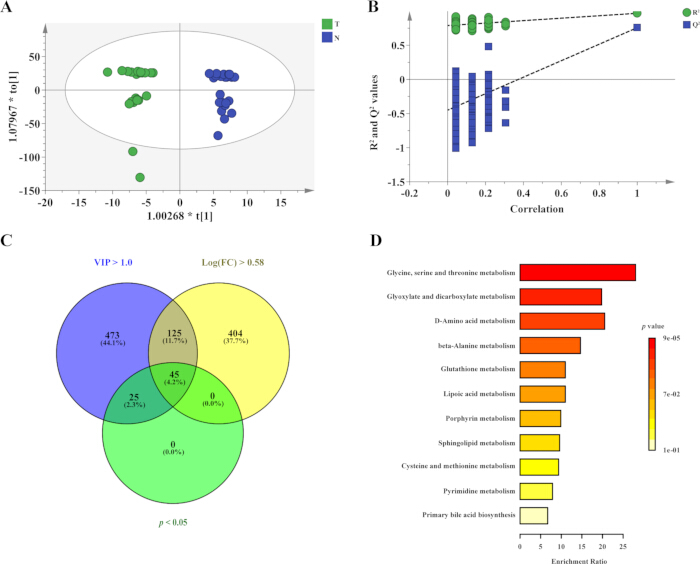
איור 1: מטבולימיקה של רקמות חושפת תכנות מטבולי מחדש הקשור לגליצין ב-LUAD. (A) תרשים תוצאות OPLS-DA המראה הפרדה בין רקמות LUAD (T, בירוק) לרקמות נורמליות סמוכות זוגיות (N, בכחול). (B) מבחן פרמוטציה המעריך את היציבות ואת ביצועי הניבוי של מודל ה-OPLS-DA בהתבסס על ערכי R2 ו-Q2. (C) דיאגרמת ונ המראה את החפיפה של מאפיינים דיפרנציאליים שסוננו לפי מדד VIP > 1.0, |log2(FC)| > 0.58, ו-p < 0.05. ארבעה חמישים מאפיינים נשמרו. (D) ניתוח העשרה של קבוצות מטבוליטים המבוסס על KEGG עבור מטבוליטים דיפרנציאליים. אורך העמודה מציין את יחס ההעשרה ועוצמת הצבע מייצגת את ערך ה-p . קיצורים: VIP = variable importance in projection; FC = fold change. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
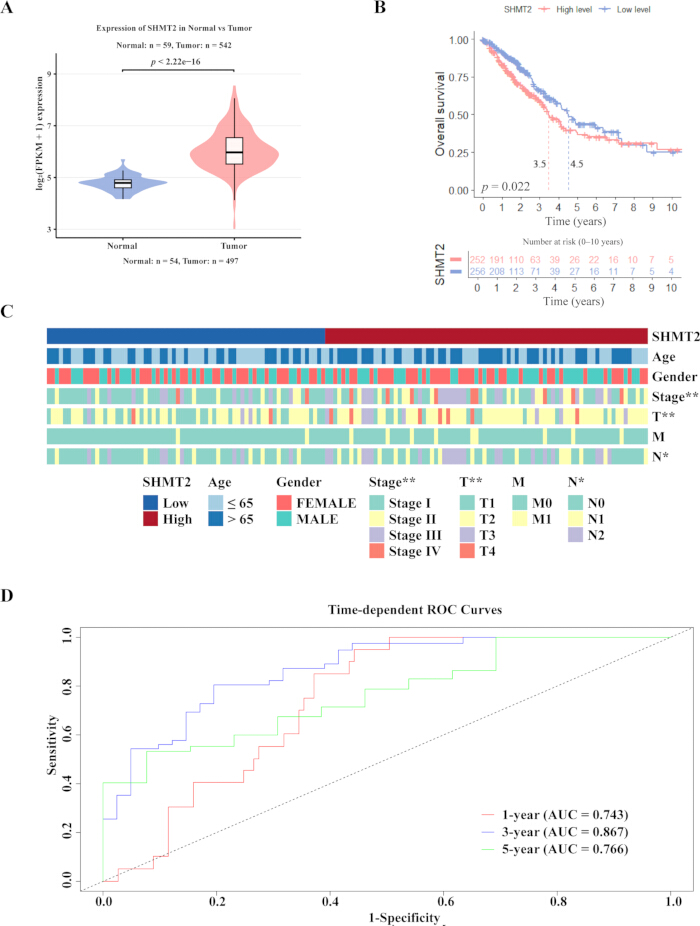
איור 2: ביטוי יתר של SHMT2 ב-LUAD המנבא פרוגנוזה לא חיובית ב-TCGA-LUAD. (א) תרשים כינור המשווה את ביטוי SHMT2 בין רקמות ריאה נורמליות (n = 59) לבין גידולי LUAD (n = 542) באמצעות נתוני RNA-seq של TCGA-LUAD. (ב) עקומות הישרדות כוללת של Kaplan-Meier עבור חולים שחולקו לפי ערך הביטוי החציוני של SHMT2. ביטוי SHMT2 גבוה מסומן בורוד, וביטוי SHMT2 נמוך מסומן בכחול. (ג) מפת חום המראה את הקשרים בין ביטוי SHMT2 למאפיינים קליניקופתולוגיים, כולל גיל, מין, שלב פתולוגי כולל (Stages I–IV), שלב גידול ראשוני (T1–T4), שלב קשרי לימפה אזוריים (N0–N2), ושלב גרורות רחוקות (M0–M1). * מציין הבדלים מובהקים סטטיסטית בין קבוצות SHMT2-high ו-SHMT2-low (*p < 0.05; **p < 0.01; מבחן Chi-square). (ד) עקומות ROC תלויות-זמן המעריכות את ביצועי הפרוגנוזה של ביטוי SHMT2 לניבוי הישרדות כוללת של שנה אחת, 3 שנים ו-5 שנים בחולים עם LUAD. ערכי ה-AUC המתאימים מוצגים בלוח. קיצורים: SHMT2 = serine hydroxymethyltransferase 2; FPKM = fragments per kilobase of transcript per million mapped reads; ROC = receiver operating characteristic; AUC = area under the curve. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
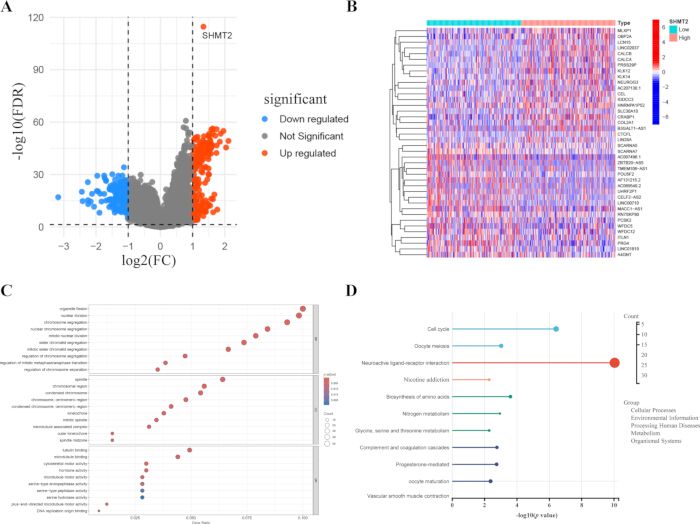
איור 3: פרופיל טרנסקריפטומי של גידולים עם ביטוי SHMT2 גבוה לעומת נמוך מדגיש את מטבוליזם של SGOC/פחמן אחד ותוכניות פרוליפרטיביות. (A) תרשים געש המראה גנים עם ביטוי דיפרנציאלי בין גידולי LUAD עם ביטוי SHMT2 גבוה לנמוך. גנים עם ביטוי מוגבר מוצגים באדום, גנים עם ביטוי מופחת בכחול, וגנים שאינם מובהקים באפור. (B) מפת חום של DEGs מייצגים עם קיבוץ היררכי לא מונחה. (C) ניתוח העשרת Gene Ontology של גנים עם ביטוי דיפרנציאלי. גודל הבועה מציין את מספר הגנים, הצבע מייצג את ערך ה- p המתוקנן, וציר ה-x מציין את יחס הגנים. (D) ניתוח העשרת מסלולי KEGG של גנים עם ביטוי דיפרנציאלי. גודל הנקודה מייצג את מספר הגנים, וציר ה-x מציין −log₁₀(p value). קיצורים: SHMT2 = serine hydroxymethyltransferase 2; FDR = false discovery rate; FC = fold change. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
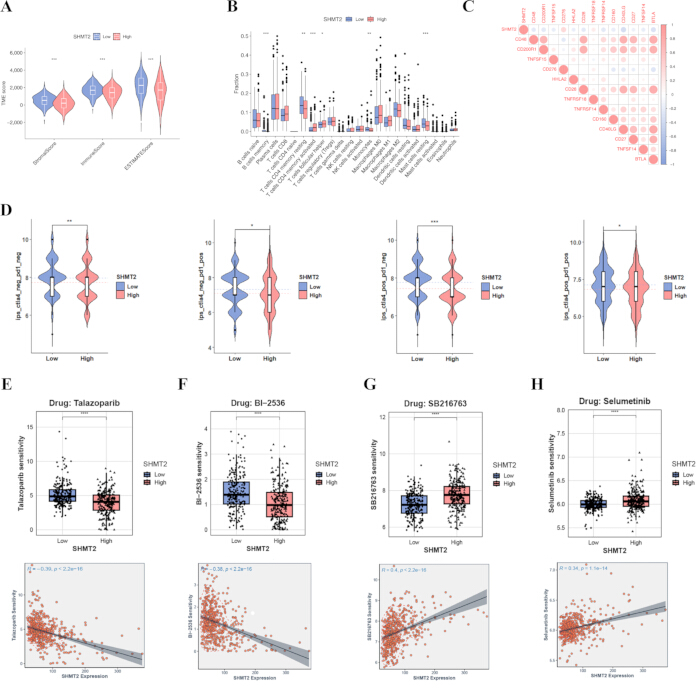
איור 4: ביטוי SHMT2 קשור למבנה החסוני של הגידול, לתגובה חזויה לאימונותרפיה ולרגישות לתרופות. (A) השוואה של מדד TME, מדד ESTIMATE, מדד סטרומלי (stromal score), מדד חיסוני (immune score) וטוהר הגידול בין קבוצות הביטוי הגבוה של SHMT2 לביטוי הנמוך של SHMT2. (B) השוואה של חדירת תאי מערכת החיסון כפי שהוערכה על ידי CIBERSORT בין גידולים עם ביטוי נמוך של SHMT2 לבין גידולים עם ביטוי גבוה של SHMT2. (C) מטריצת מתאמי Spearman בין SHMT2 לבין גנים הקשורים לנקודות בקרה חיסוניות (immune checkpoint). גודל העיגול משקף את עוצמת המתאם והצבע מייצג את ערך ρ של Spearman (חיובי לשלילי). (D) השוואות Immunophenoscore תחת ארבע הגדרות של חסימת נקודות בקרה חיסוניות (CTLA4-/PD-1-, CTLA4-/PD-1+, CTLA4+/PD-1-, CTLA4+/PD-1+), המצביעות על תועלת חזויה מופחתת בגידולים עם ביטוי גבוה של SHMT2. (E) רגישות חזויה ל-Talazoparib בקבוצות הביטוי הגבוה והנמוך של SHMT2, המוצגת כערכי IC₅₀ מוערכים (למעלה) והמתאם בין ביטוי SHMT2 לרגישות החזויה לתרופה (למטה). (F) רגישות חזויה ל-BI-2536 בקבוצות הביטוי הגבוה והנמוך של SHMT2, המוצגת כערכי IC₅₀ מוערכים (למעלה) והמתאם בין ביטוי SHMT2 לרגישות החזויה לתרופה (למטה). (G) רגישות חזויה ל-S63845 בקבוצות הביטוי הגבוה והנמוך של SHMT2, המוצגת כערכי IC₅₀ מוערכים (למעלה) והמתאם בין ביטוי SHMT2 לרגישות החזויה לתרופה (למטה). (H) רגישות חזויה ל-Selumetinib בקבוצות הביטוי הגבוה והנמוך של SHMT2, המוצגת כערכי IC₅₀ מוערכים (למעלה) והמתאם בין ביטוי SHMT2 לרגישות החזויה לתרופה (למטה). קיצורים: SHMT2 = serine hydroxymethyltransferase 2; TME = tumor microenvironment; ESTIMATE = Estimation of STromal and Immune cells in MAlignant Tumor tissues using Expression data; IC₅₀ = half-maximal inhibitory concentration. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
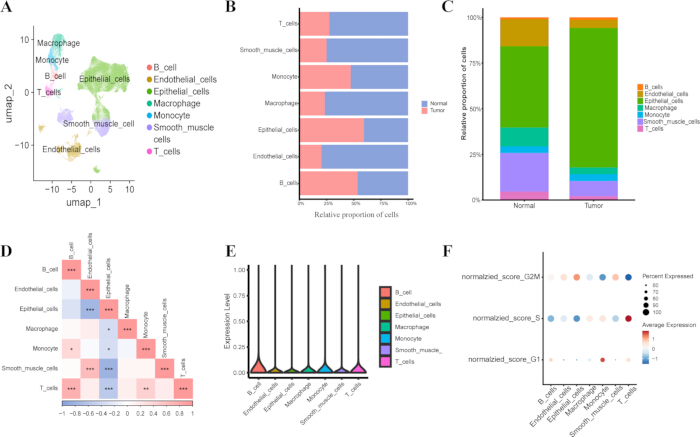
איור 5: נוף של תאים בודדים חושף הרכב תאי משתנה, הטיות בביטוי של SHMT2 והטרוגניות של מחזור התא ב-LUAD. (A) ויזואליזציית UMAP של טרנסקריפטומים של תאים בודדים הזמינים לציבור מ-LUAD ומרקמות ריאה נורמליות סמוכות, צבועים לפי סוג תא מאוannotated. (B) פרופורציות יחסיות של סוגי תאים בדגימות נורמליות וגידוליים המוצגות כסרגים אופקיים מוערמים. (C) הרכב תאי כללי המוצג כסרגים אנכיים מוערמים. (D) מפת חום של מתאם Spearman לפרופורציות של סוגי תאים; אדום מעיד על מתאם חיובי וכחול מעיד על מתאם שלילי (*p < 0.05, **p < 0.01, ***p < 0.001). (E) תרשימי כינור (Violin plots) של ביטוי SHMT2 לאורך סוגי התאים העיקריים. (F) תרשים נקודות (Dot plot) המראה ציוני מחזור תא לשלבי G1, S ו-G2/M לאורך סוגי התאים שזוהו; גודל הנקודה מעיד על אחוז התאים, והצבע מעיד על ציון מחזור התא הממוצע. קיצורים: UMAP = Uniform Manifold Approximation and Projection. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
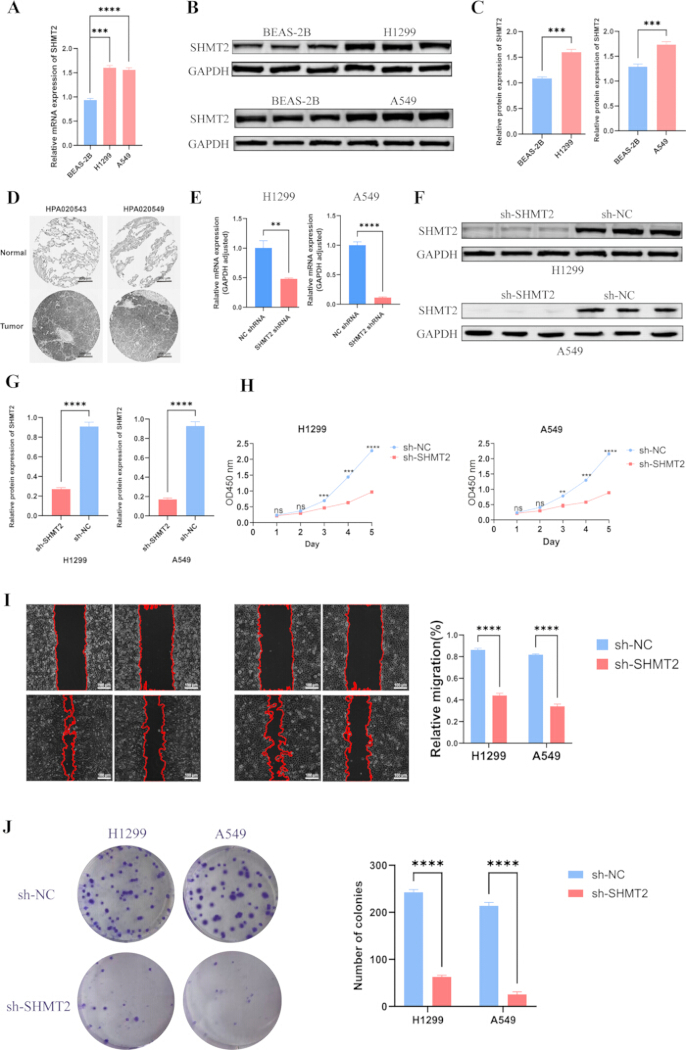
איור 6: תיקוף ניסיוני והיסטולוגי של ביטוי SHMT2 והשפעות תפקודיות של knockdown ל-SHMT2 בתאי LUAD. (A) ניתוח RT-qPCR של ביטוי mRNA של SHMT2 בתאי אפיתל סימפוניים נורמליים (BEAS-2B) ובקווי תאי LUAD (H1299 ו-A549). (B) ניתוח Western blot של ביטוי חלבון SHMT2 בתאי BEAS-2B, H1299 ו-A549, כאשר GAPDH שימש כבקרת טעינה. (C) כימות דנסומוטרי של ביטוי חלבון SHMT2 שנורמל ל-GAPDH בתאי H1299 ו-A549 ביחס ל-BEAS-2B. (D) תמונות אימונוהיסטוכימיה (IHC, x20) מייצגות של SHMT2 ברקמת ריאה נורמלית וברקמות LUAD מה-HPA תוך שימוש בנוגדנים HPA020543 ו-HPA020549. (E) תיקוף RT-qPCR של יעילות knockdown של SHMT2 בתאי H1299 ו-A549 שעברו טרנספקציה עם sh-SHMT2 או sh-NC. (F) ניתוח Western blot של ביטוי חלבון SHMT2 לאחר knockdown של SHMT2 בתאי H1299 ו-A549. (G) כימות דנסומוטרי של רמות חלבון SHMT2 שנורמלו ל-GAPDH לאחר knockdown של SHMT2. (H) בדיקות Cell Counting Kit-8 (CCK-8) המראות את ההשפעות של knockdown ל-SHMT2 על שגשוג תאים בתאי H1299 ו-A549. (I) בדיקות ריפוי פצע (Wound-healing assays, x200) המראות יכולת נדידה מופחתת לאחר knockdown של SHMT2 בתאי H1299 ו-A549; הפאנל הימני מראה כימות של נדידה יחסית. (J) בדיקות יצירת מושבות המראות יכולת קלונוגנית מופחתת לאחר knockdown של SHMT2 בתאי H1299 ו-A549; הפאנל הימני מראה כימות של מספר המושבות. הנתונים מוצגים כממוצע ± SD מתוך לפחות שלושה ניסויים עצמאיים. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. קיצורים: sh-NC = short hairpin RNA negative control; sh-SHMT2 = short hairpin RNA targeting SHMT2. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
איור משלים 1: ביטוי SHMT2 נמצא בקשר הפוך לרגישות חזויה לתרופות ב-TCGA-LUAD. תגובה חזויה לתרופות הוסקה עבור דגימות TCGA-LUAD והושוותה בין גידולים עם רמות SHMT2 נמוכות לבין גידולים עם רמות SHMT2 גבוהות, כפי שהוגדרו על פי ערך החציונה. עבור כל תרכובת, הפאנל העליון מציג הבדלים בין-קבוצתיים ב-IC50 ציון תגובה המבוסס על (ריכוז עיכוב חציוני מקסימלי) (ערכים נמוכים יותר מעידים על רגישות חזויה גבוהה יותר), והפאנל התחתון מראה את הקשר בין ביטוי רציף של SHMT2 לבין רגישות חזויה עם קו רגרסיה לינארית מותאם ופס רב-הסתברות של 95%. להשוואות בין קבוצות נעשה שימוש במבחן Wilcoxon rank-sum דו-צדדי, ומתאמים מדווחים כ-r של Spearman עם ה- p ערכים (* p < 0.05, ** p < 0.01, *** p < 0.001). (A(ציטראבין)B) GDC0810. (C) P22077. (D(אירינוטקן. (ה) AZD4547. (F(Palbociclib).ג') VE821. (הI-BRD9.Iאוקסליפלאטין (Oxaliplatin).אנא לחצו כאן להורדת קובץ זה.
איור משלים 2: ויזואליזציה באמצעות תרשימי Ridge של התפלגויות מדדי שלבי מחזור התא בין סוגי תאים ברזולוציית תא בודד. תרשימי Ridge מציגים התפלגויות נורמלליזציה של מדדי מחזור התא בין סוגי תאים עיקריים, כולל תאי B, תאי T, תאים אפיתליאליים, מקרופאגים, מונוציטים, תאים אנדותליאליים ותאי שריר חלק. (A) מדדי שלב G1. (B) מדדי שלב S. (C) מדדי שלב G2/M. הבדלים בצורת ההתפלגות ובמיקום השיא מעידים על הטרוגניות במצבים פרוליפרטיביים בין אוכלוסיות תאים בתוך המיקרו-סביבה של LUAD.אנא לחץ כאן להורדת הקובץ.
טבלה משלימה 1: מאפיינים קליניקו-פתולוגיים אנונימיים של 23 החולים עם LUAD שנכללו במטבוליומיקה של רקמות זוגיות. המשתנים כוללים מספר חולה, מין, גיל, שלב הגידול הראשוני (T), שלב קשרי לימפה אזוריים (N), ושלב פתולוגי כללי. אנא לחצו כאן כדי להוריד קובץ זה.
טבלה נלווית 2: מטבוליטים דיפרנציאליים שזוהו ב-LUAD לעומת רקמות נורמליות סמוכות בזוגות. הטבלה מפרטת את מספר הגישה ב-HMDB, שם המטבוליט, הנוסחה המולקולרית, ציון ה-VIP, ערך log₂(FC), וערך p עבור כל מטבוליט דיפרנציאלי. קיצורים: HMDB = Human Metabolome Database; VIP = variable importance in projection; FC = fold change. נא ללחוץ כאן להורדת קובץ זה.
טבלה משלימה 3: רצפי פריימרים ששימשו עבור PCR עם שעתוק הפוך כמותי (RT-qPCR). הטבלה מפרטת את הגן המטרה, כיוון הפריימר (קדמי או אחורי) ורצף הפריימר (5′–3′) ששימשו לניתוח ביטוי גנים.אנא לחצו כאן כדי להוריד קובץ זה.
דיון
מחקר זה השתמש במסגרת רצפית הכוללת גילוי מטבולומי, תיעדוף אנזימים, פרשנות טרנסקריפטומית, הערכת הקשר חיסוני, לוקליזציה ברמת התא הבודד ותיקוף תפקודי של תאי גידול. האנליזות מזהות עיצוב מחדש מטבולי של גליצין ושל SGOC ב-LUAD ומקשרות את SHMT2 לתוצאות שליליות ולתועלת נמוכה יותר מטיפול אימונותרפי כפי שחזו מודלים חישוביים. תיעדוף זה חזק יותר מהסתמכות על שכבת אומיקה בודדת, אך אינו מבסס מנגנון סיבתי חיסוני.
SHMT2 מהווה נקודת כניסה מיטוכונדריאלית מרכזית להמרה של serine ל-glycine וליצירת יחידות פחמן אחת (one-carbon units). ניתוח של TCGA-LUAD הראה על-ביטוי (upregulation) של SHMT2 הקשור לגידולים, וקישר ביטוי גבוה להישרדות נמוכה יותר ומאפיינים קליניקו-פתולוגיים שליליים. ממצאים אלו עולים בקנה אחד עם מחקרים הקושרים את SHMT2 להישרדות, פרולפרציה, פלישה ועמידות לטיפול של תאי סרטן20,21,22,23. עבודות נוספות קישרו את SHMT2 לבקרה אפיגנטית והניעו את הפיתוח של מעכבים סלקטיביים של אנזימי one-carbon24,25. ניתוחי ביטוי דיפרנציאלי והעשרה מיקמו את SHMT2 בתוך תוכנית מתואמת של SGOC ומחזור התא, ולא כשינוי מבודד ברמת הגן. לכן, ההלימה בין העשרת מסלולי מטבוליטים לבין תמלול הקשור ל-SHMT2 מחזקת את תיעדוף המועמדים, בעוד שהיא נותרת קורלטיבית בין שכבות האומיקה השונות.
ניתן להסביר את הקשר בין גידולים עם ביטוי גבוה של SHMT2 לבין הקשר חיסוני נחית באמצעות שלושה מסלולים שאינם מוסיגים זה את זה. ראשית, דרישה מוגברת של תאי הגידול לסרין, גליצין, יחידות פחמן אחת הקשורות לפולאט ומסובס和טרים של מחזור המתיונין עשויה לשנות את חלוקת הנוטריאנטים ולהפחית את הכשירות המטבולית של לימפוציטים שכנים. שנית, ייצור NADPH, גלוטתיון ונוקלאוטידים הנתמך על ידי SHMT2 עשוי לשפר את הישרדות תאי הגידול תחת עקה חמצונית ותזונתית, ובכך לשנות את אותות העקה המשתחררים לסביבה המיקרוסקופית. שלישית, זרימת פחמן אחת וזמינות של S-adenosylmethionine יכולות להשפיע על תוכניות תלויות-מתילציה הן בתאים ממאירים והן בתאי מערכת החיסון26,27,28,29. מנגנונים אלו סבירים מבחינה ביולוגית, אך ניתוחי ה-bulk וה-single-cell הנוכחיים לא מדדו באופן ישיר מטבוליטים מקומיים, הפרשת ציטוקינים או תפקוד של תאי מערכת החיסון. כתוצאה מכך, תועלת נמוכה יותר כפי שנחזתה על ידי TIDE/TCIA בגידולים עם ביטוי גבוה של SHMT2 צריכה להיחשב כהיפותזה הקושרת את פעילות SGOC לנחיתות חיסונית, ולא כהוכחה לכך ש-SHMT2 גורם לעמידות קלינית לאימונותרפיה.
ניתוחים ברמת התא הבודד מספקים רזולוציה מבנית נוספת. ניתוח של נתוני single-cell RNA-seq הזמינים לציבור הראה הרכב תאי משתנה ברקמות גידול לעומת רקמות ריאה נורמליות, ומתאם חיובי בין פרופורציות של תאי B ותאי T, דבר העולה בקנה אחד עם חסינות אדפטיבית מתואמת30. ביטוי של SHMT2 היה מועשר יחסית בתאי B אך נותר ניתן לגילוי בתאים אפיתליאליים. תצפית זו רלוונטית מכיוון שתאי B ומבנים לימפואידיים שלישוניים יכולים לתמוך בהצגת אנטיגן, בתגובות נוגדנים מקומיות ובתגובה לחסימה של נקודות בקרה חיסוניות18,31,32,33; עם זאת, היא אינה מזהה את תת-הסוג של תאי ה-B האחראים לכך או קובעת אם ביטוי של SHMT2 בתאי B הוא מועיל או מזיק. תוצאות ה-Bulk וה-single-cell התכנסו גם הן לפעילות מחזור התא: מונחים של מיטוזה והפרדת כרומוזומים היו מועשרים בגידולים עם רמות גבוהות של SHMT2, וציוני שלבי S ו-G2/M השתנו בין סוגי תאים שונים. מכיוון שחילוף חומרים של פחמן אחד במיטוכונדריה מספק חומרי מוצא לנוקלאוטידים, ממצאים אלו תומכים בקשר סביר בין פעילות SGOC הקשורה ל-SHMT2 לבין דרישה פרוליפרטיבית.
Xi ואחרים זיהו תוכנית של TP63-RAC2 שהגבירה אפרוציטוזה של מקרופאגים, קידמה קיטוב דמוי-M2, ועיצבה מחדש סרטן של הוושש לעבר דיכוי חיסוני34, ובכך סיפקו דוגמה ישירה לתקשורת בין גידול למקרופאגים. Jiang ואחרים קשרו את SATB2 בסרטן הלבלב לשגשוג ולנדידה של תאי גידול, וכן לשינוי בצytotoxicity של תאי T35, מה שממחיש השפעות בו-זמנית הן פנימיות לגידול והן חיסוניות. לעומת זאת, Liu ואחרים הראו כי TRIM29 הניע גליובלסטומה באמצעות דה-גרדציה של NEFL והפעלת PI3K/AKT36; מנגנון זה, שהוא בעיקרו פנימי לגידול, מזהיר מפני ייחוס של כל קשר חיסוני שלילי לאיתות של ציטוקינים. Zhai ואחרים זיהו הגברה של איתות NF-κB המתווכת על ידי WDR54 בקרצינומה של התאים הכבדיים37, תוך הדגשת צומת דלקתי המגיב לציטוקינים שיכול לקשור התנהגות ממאירה לאיתות של המיקרו-סביבה. Yin ואחרים השתמשו בניסויי תרבית משותפת וניסויי in vivo כדי להראו כי PLAU שיתף פעולה עם אינטראקציות פרי-נורליות הקשורות לגורם גדילה עצבי בסרטן ראש וצוואר38, ובכך הוכיחו שגורמים מסיסים וחוץ-תאיים יכולים לארגן תקשורת סטרומלית שאינה חיסונית. לבסוף, Liu ואחרים סיכמו את התפקידים הכפולים והתלויים-בהקשר של איתות JAK/STAT המונע על ידי ציטוקינים: איתות מתמשך של IL-6/STAT3 ואיתות הקשור ל-IFN יכולים לקדם ביטוי של PD-L1, מצבים מיאלואידיים מדכאים ותשיקות של תאי T, בעוד שאיתות בתזמון נכון נדרש גם להצגת אנטיגן ולחסינות נגד גידולים39. יחד, מחקרים אלה מספקים רציונל ביולוגי לבדיקה האם תכנות מחדש של SGOC משנה מצבים של ציטוקינים, מקרופאגים, סטרומה או לימפוציטים, אך אף אחד מהם לא ביסס מעגל ציטוקינים ספציפי ל-SHMT2 ב-LUAD. ממצאי TIDE/TCIA הנוכחיים מגדירים, אם כן, כיוון הניתן לבדיקה עבור עבודה מכניסטית.
בקרה רדוקסית (Redox) מספקת הקשר מכניסטי רלוונטי במיוחד. DeNicola et al. הדגימו בסרטן ריאה מסוג non-small cell כי NRF2 מווסת את PHGDH, PSAT1 ו-SHMT2 באמצעות ATF4, ובכך תומך בייצור גלוטתיון ונוקלאוטידים ומקשר תוכנית זו לפרוגנוזה גרועה40. לאחרונה, Zhang et al. הראו כי תאי אדנוקרצינומה של הוושחט ששרדו עיכוב של HER2 הצטבר בהם NRF2; השתקת NRF2 הגבירה את הציטוטוקסיות של lapatinib, בעוד שביטוי מתמשך של NRF2 הפחית את הרגישות ויצר תלות ב-NRF241. במחקר האחרון לא נבחן באופן ישיר עיכוב של SHMT2, אך ממצאים אלו מצביעים יחד על כך ש-SHMT2 עשוי לתפקד כחלק מתוכנית ביוסינתטית ורדוקסית הנתמכת על ידי NRF2. ב-LUAD, יש לבחון השערה זו באמצעות סטרטיפיקציה של סטטוס KEAP1/NFE2L2 ובדיקה האם הפרעה ל-SHMT2 מגבירה באופן סלקטיבי את רמות המינים החמצוניים רבוליים (reactive oxygen species) או מחזירה את הרגישות לטיפול במודלים עם NRF2 פעיל.
בהשוואה לניתוחים המבוססים על מטבוליזומיקה בלבד או טרנסקריפטומיקה בלבד, זרימת העבודה המשולבת מקשרת בין אות מטבולי ברמת הרקמה לבין ביטוי גנים רלוונטי למסלול, התפלגות סוגי תאים ופנוטיפ של הפרעה. תכנון זה משפר את תעדוף המועמדים וניתן להרחבתו על ידי החלפת קוהורטות טרנסקריפטומיות ציבוריות או קוהורטות של תא בודד, אך כל שכבה מציגה מקורות שונות של שונות. הקפאה מהירה ואחידה של הרקמה היא קריטית, כיוון שעיכוב לאחר החיתוך עלול לשנות את שפע המולקולות הקטנות. סחף בספקטרומטריית מסות, אות יוני כולל לא יציב או ביצועי פרמוטציה חלשים צריכים להוביל לכיול מחדש, סקירה של איכות האות וניתוח חוזר לפני פרשנות המטבוליטים. ניתוחים של תאים מרובים (Bulk) דורשים הגדרה מראש של קבוצות וספי רסינון, בעוד שמסקנות מתאי תא בודד צריכות להיבחן תחת הגדרות סבירות של בקרת איכות ורזולוציית אשכולות (clustering resolution). תיקוף In vitro דורש מעבר תאים (passage) תואם, רמת התלכדות (confluence) דומה, רוחב פצע אחיד ואישור להשתקה (knockdown) של SHMT2 לפני בדיקות הפנוטיפ. נקודות בקרה אלו משפרות את השחזוריות אך אינן מבטלות השפעות ספציפיות לקוהורטה, לפלטפורמה או למודל.
מספר מגבלות מעכבות את הפרשנות. קבוצת המטבוליזם של הרקמות הייתה צנועה, והמטבוליטים שזוהו דורשים תיקוף כמותי ממוקד. התועלת מהאימונותרפיה והרגישות לתרופות הוסקו ממודלים מבוססי טרנסקריפטום ולא נמדדו בקבוצה שטופלה ב-ICI או בניסוי פרמקולוגי. מערך הנתונים של התא הבודד מרמז על ביטוי SHMT2 המוטה לתאי B, אך אינו מביא לפתרון של תת-סוג תאי ה-B, הארגון המרחבי או התפקוד החסוני התלוי ב-SHMT2. ניסויי ה-in vitro מבססים פנוטיפ של צמיחה ונדידה של תאי גידול לאחר השתקה גנטית, אך אינם מבססים מנגנון חסוני המתווך על ידי ציטוקינים או בטיחות טיפולית. מחקרים עתידיים צריכים לבצע סטרטיפיקציה של גידולים לפי סטטוס KEAP1/NFE2L2, לכמת את זרימת ה-SGOC והפרשת ציטוקינים, ולשלב הפרעה של SHMT2 עם תרביות משותפות של תאי מערכת החיסון, פרופיל מרחבי, מחקרי סלקטיביות פרמקולוגית ותיקוף in vivo.
לסיכום, SHMT2 מקושר לארגון מחדש מטבולי של SGOC, לפרוגנוזה לא חיובית, לתוכניות שעתוק פרוליפרטיביות, להקשר גידולי עם חיסרון חיסוני, ולמענה נמוך יותר לאימונותרפיה כפי שחוזה חישובית ב-LUAD. ניתוח של תאים בודדים הצביע על העשרה יחסית של ביטוי SHMT2 באוכלוסיות של תאי B, בעוד ששתיקה (knockdown) in vitro הפחיתה פרוליפרציה, נדידה וצמיחה קלונוגנית בתאי LUAD. ממצאים אלו תומכים ב-SHMT2 כביומארקר מועמד לוולידציה נוספת ומספקים מסגרת הניתנת לבדיקה למחקר של אינטראקציות מטבוליות-חיסוניות.
גילויים
המחברים מצהירים כי אין להם ניגודי עניינים.
תודות
המחברים מודים למטופלים ולבני משפחותיהם על השתתפותם במחקר זה. המחברים מודים גם לתורמים למסדי הנתונים TCGA, GEO ו-HPA על כך שהפכו את נתוניהם לנגישים לציבור. מחקר זה מומן על ידי תוכנית המחקר והפיתוח המרכזית של מחוז ג'יאנגשי (מענק מס' 20223BBG71009) והקרן הלאומית למדעי הטבע של סין (מענקים מס' 81860379 ו-82160410).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| תאי A549 | CCL-185 | ATCC | |
| נוגדן anti-GAPDH | M1310-2 | Huaan Biotechnology | |
| נוגדן anti-SHMT2 | D197021 | Sangon Biotech | |
| תאי BEAS-2B | CRL-9609 | ATCC | |
| ערכה לספירת תאים-8 (CCK-8) | K1018 | APExBIO | |
| מאגר נתונים: TCGA / GDC | נגש ב-2025-12-18 | המכון הלאומי לסרטן (NCI) | |
| מאגר נתונים: GEO | נגש ב-2025-12-20 | NCBI | |
| מאגר נתונים: HMDB | נגש ב-2025-12-12 | מאגר המטבולום האנושי | |
| מאגר נתונים: KEGG | נתアクセス ב-2025-12-11 | Kanehisa Laboratories | |
| מאגר נתונים: Human Protein Atlas | אטלס החלבונים (Protein Atlas) | ||
| מאגר נתונים: GDSC | מהדורה דצמבר 2023 | Sanger Institute | |
| מאגר נתונים: Ensembl | 2025-12 | EMBL-EBI | |
| מאגר נתונים: TCIA | נגש ב-2025-12-10 | אטלס האימונום של הסרטן | |
| תאי H1299 (NCI-H1299) | CRL-5803 | ATCC | |
| נוגדן משני המשורשר ל-HRP | D110087 | Sangon Biotech | |
| HiScript II Q Select RT SuperMix | KR116 | Tiangen Biotech | |
| מערכת LightCycler 480 | 5015278001 | Roche | |
| חלב דל שומן | ריאגנט מעבדה נפוץ | BD (או כפי שנעשה בו שימוש) | |
| ממברנת PVDF, 0.22 µm | GVHP00010 (או ריאגנט מעבדתי נפוץ) | MilliporeSigma (או כפי שנעשה בו שימוש) | |
| חבילת R: pRoloc | 1.40.0 | Bioconductor | |
| חבילת R: TCGAbiolinks | 2.26.0 | Bioconductor | |
| חבילת R: survival | 3.4-0 | CRAN | |
| חבילת R: survminer | 0.4.9 | CRAN | |
| חבילת R: timeROC | 1.0.4 | CRAN | |
| חבילת R: DESeq2 | 1.38.1 | Bioconductor | |
| חבילת R: ggplot2 | 3.4.4 | CRAN | |
| חבילת R: pheatmap | 1.0.12 | CRAN | |
| חבילת R: clusterProfiler | 4.6.2 | Bioconductor | |
| חבילת R: org.Hs.eg.db | 3.16.0 | Bioconductor | |
| חבילת R: estimate | 1.0.13 | Bioconductor / GitHub | |
| חבילת R: CIBERSORT | 1 | (סקריפט R עצמאי) | |
| חבילת R: corrplot | 0.92 | CRAN | |
| חבילת R: TIDE | 0.3.0 | חבילת R | |
| חבילת R: oncoPredict | 1.1.1 | CRAN / GitHub | |
| חבילת R: GEOquery | 2.66.0 | Bioconductor | |
| חבילת R: Seurat | 4.3.0 | CRAN | |
| חבילת R: SingleR | 1.10.0 | Bioconductor | |
| חבילת R: scran | 1.26.0 | Bioconductor | |
| תערובת מאסטר ל-qPCR עם SYBR Green (אוניברסלית) | HY-K0501A | MedChemExpress (MCE) | |
| ריאגנט TRIzol Universal | DP424 | Tiangen Biotech |
מקורות
- Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75(1):10-45.
- Lim ZF, Ma PC. Emerging insights of tumor heterogeneity and drug resistance mechanisms in lung cancer targeted therapy. J Hematol Oncol. 2019;12(1):134.
- Wang M, Herbst RS, Boshoff C. Toward personalized treatment approaches for non-small-cell lung cancer. Nat Med. 2021;27:1331-1340.
- Passaro A, et al. Managing resistance to immune checkpoint inhibitors in lung cancer: treatment and novel strategies. J Clin Oncol. 2022;40:598-609.
- Faubert B, Solmonson A, DeBerardinis RJ. Metabolic reprogramming and cancer progression. Science. 2020;368:eaaw5473.
- Wei S, et al. Targeting serine-glycine-one-carbon metabolism as a vulnerability in cancers. Biomark Res. 2023;11:48.
- Kao KC, Vilbois S, Tsai CH, Ho PC. Metabolic communication in the tumour-immune microenvironment. Nat Cell Biol. 2022;24(11):1574-1583.
- Wong C, Qian Y, Yu J. Interplay between epigenetics and metabolism in oncogenesis: mechanisms and therapeutic approaches. Oncogene. 2017;36:3359-3374.
- Xu M, Pei DS. Serine hydroxymethyltransferase 2: a novel target for human cancer therapy. Invest New Drugs. 2021;39:1671-1681.
- Zeng Y, et al. Roles of mitochondrial serine hydroxymethyltransferase 2 (SHMT2) in human carcinogenesis. J Cancer. 2021;12(19):5888-5894.
- Liberati FR, et al. RNA-mediated inhibition of mitochondrial SHMT2 impairs cancer cell proliferation. Cell Death Discov. 2025;11:369.
- Fu R, et al. SHMT proteins: an emerging set of serine hydroxymethyltransferase in cancer. Cell Signal. 2025;135:111977.
- Zhang Y, et al. SHMT2 promotes cell viability and inhibits ROS-dependent, mitochondrial-mediated apoptosis via the intrinsic signaling pathway in bladder cancer cells. Cancer Gene Ther. 2022;29(10):1514-1527.
- Wens M, et al. Metabolic control of BRISC-SHMT2 assembly regulates immune signalling. Nature. 2019;570:460-464.
- Ivashkiv LB. IFNγ: signalling, epigenetics and roles in immunity, metabolism, disease and cancer immunotherapy. Nat Rev Immunol. 2018;18:545-558.
- De Martino M, Rathmell JC, Galluzzi L, Vanpouille-Box C. Cancer cell metabolism and antitumour immunity. Nat Rev Immunol. 2024;24:654-669.
- Qi Y, et al. One-carbon metabolism shapes T cell immunity in cancer. Trends Endocrinol Metab. 2024;35:961-974.
- Huang D, et al. The single-cell immunogenomic landscape of B and plasma cells in early-stage lung adenocarcinoma. Cancer Discov. 2022;12:2545-2563.
- Dolgalev I, et al. Inflammation in the tumor-adjacent lung as a predictor of clinical outcome in lung adenocarcinoma. Nat Commun. 2023;14:6479.
- Han T, et al. Phosphorylated SHMT2 regulates oncogenesis through m6A modification in lung adenocarcinoma. Adv Sci (Weinh). 2024;11:e2307834.
- Lee GY, et al. Comparative oncogenomics identifies PSMB4 and SHMT2 as potential cancer driver genes. Cancer Res. 2014;74:3114-3126.
- Bernhardt S, et al. Proteomic profiling of breast cancer metabolism identifies SHMT2 and ASCT2 as prognostic factors. Breast Cancer Res. 2017;19:112.
- Yang G, Tan J, Guo J, Wu Z, Zhan Q. Exosome-mediated transfer of circ_0063526 enhances cisplatin resistance in gastric cancer cells via regulating the miR-449a/SHMT2 axis. Anticancer Drugs. 2022;33(10):1047-1057.
- Parsa S, et al. The serine hydroxymethyltransferase-2 (SHMT2) initiates lymphoma development through epigenetic tumor suppressor silencing. Nat Cancer. 2020;1:653-664.
- Cuthbertson CR, et al. A review of small-molecule inhibitors of one-carbon enzymes: SHMT2 and MTHFD2 in the spotlight. ACS Pharmacol Transl Sci. 2021;4:624-646.
- Reina-Campos M, Scharping NE, Goldrath AW. CD8+ T cell metabolism in infection and cancer. Nat Rev Immunol. 2021;21:718-738.
- Bacigalupa ZA, Landis MD, Rathmell JC. Nutrient inputs and social metabolic control of T cell fate. Cell Metab. 2024;36:10-20.
- Li S, et al. Metabolic regulation of immunity in the tumor microenvironment. Cell Rep. 2025;44(11):116463.
- Ouyang Y, et al. S-adenosylmethionine: a metabolite critical to the regulation of autophagy. Cell Prolif. 2020;53(11):e12891.
- Wang R, et al. The interaction of innate immune and adaptive immune system. MedComm. 2024;5(10):e714.
- Teillaud JL, et al. Tertiary lymphoid structures in anticancer immunity. Nat Rev Cancer. 2024;24:629-646.
- Fridman WH, et al. B cells and tertiary lymphoid structures as determinants of tumour immune contexture and clinical outcome. Nat Rev Clin Oncol. 2022;19:441-457.
- Lauss M, Donia M, Svane IM, Jönsson G. B cells and tertiary lymphoid structures: friends or foes in cancer immunotherapy? Clin Cancer Res. 2022;28(9):1751-1758.
- Xi Y, et al. Macrophage efferocytosis mediated by the TP63-RAC2 pathway promotes immunosuppressive remodeling in esophageal cancer. Cell Rep Med. 2026;7(1):102529.
- Jiang G, et al. SATB2 plays a critical role in pancreatic cancer cell proliferation, migration and T cell cytotoxicity. Cancer Genet. 2025;296-297:53-64.
- Liu Y, et al. TRIM29 promotes glioblastoma progression via ubiquitinating NEFL and activating the PI3K/AKT signaling pathway. Cancer Genet. 2025;296-297:88-99.
- Zhai H, et al. WDR54 enhances NF-κB signaling to promote progression of hepatocellular carcinoma. Cancer Genet. 2025;298-299:302-314.
- Yin H, et al. PLAU serves as a prognostic biomarker correlated with perineural invasion in HNSCC. Cancer Genet. 2025;294-295:145-155.
- Liu Z, et al. JAK inhibition in PD-1 immunotherapy and tumor microenvironment. Front Immunol. 2026;17:1790936.
- DeNicola GM, et al. NRF2 regulates serine biosynthesis in non-small cell lung cancer. Nat Genet. 2015;47(12):1475-1481.
- Zhang W, et al. NRF2-mediated persistent adaptation of oesophageal adenocarcinoma cells to HER2 inhibition. Oncogene. 2025;44(33):2929-2941.