מחקר זה השתמש בפארמקולוגיה של רשת ובסימולציות של דינמיקה מולקולרית כדי לחקור את המנגנונים המולקולריים ואת המסלולים של plumbagin בטיפול בסרטן הערמונית. התוצאות מדגימות כי plumbagin עשוי להיקשר באופן יציב ל-AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC, ו-PPARG.
מאמר מחקר
ניתוח חישובי של פלומבגין (Plumbagin) בסרטן הערמונית באמצעות פרמקולוגיית רשת וסימולציות של דינמיקה מולקולרית
29 צפיות
⸱
11 בספטמבר 2026
* These authors contributed equally
במאמר זה
סיכום
תקציר
סרטן הערמונית הוא גורם מרכזי לתמותה הקשורה לסרטן בקרב גברים. מכיוון שחולים רבים מאובחנים רק לאחר שהמחלה התקדמה לשלב מתקדם מקומית או לשלב גרורתי, לעיתים קרובות טיפול ריפואי אינו אפשרי עוד. במחקר הנוכחי, יישמנו גישה חישובית משולבת המשלבת פרמקולוגיית רשתות, עגינה מולקולרית (molecular docking) וסימולציות של דינמיקה מולקולרית, כדי לחקור את המנגנונים המולקולריים הפוטנציאליים העומדים בבסיס ההשפעות הטיפוליות של plumbagin בסרטן הערמונית. מטרות טיפוליות פוטנציאליות זוהו באמצעות ניתוח בסיסי נתונים משולב, ולאחריו בניית רשת של אינטראקציות חלבון-חלבון, ניתוח העשרה תפקודי, עגינה מולקולרית וסימולציות של דינמיקה מולקולרית להערכת היציבות של אינטראקציות חלבון-ליגנד. הניתוחים החישובים שלנו זיהו כי plumbagin עשוי ליצור אינטראקציות יציבות עם מספר מטרות מפתח (hub targets), כולל AKT serine/threonine kinase 1 (AKT1) וקולטן האסטרוגן 1 (estrogen receptor 1). (ESR1), BCL2 וולת apoptotic regulator (BCL2), קולטן גורם גדילה של האפידרמיס (EGFR), גורם נמק גידולי (tumor necrosis factor) (TNF), פרוטאין קינאז מופעל על ידי מיטוגן 3 (MAPK3), חלבון הלם חום 90 אלפא, משפחה, מחלקה A, חבר 1 (HSP90AA1), פרוטו-אונקוגן SRC, טירוזין קינאז שאינו רצפטור (SRC), וקולטן מפעיל של פרוקסיסום גמא (peroxisome proliferator activated receptor gamma) (PPARG), המצביעים על פוטנציאל להשפיע על מסלולים מרכזיים המעורבים בהתקדמות סרטן הערמונית. אלו in silico הממצאים מספקים תובנות חדשות לגבי המנגנונים המולקולריים האפשריים של פלומבגין (plumbagin) ומספקים בסיס רציונלי לאימות ניסיוני עתידי. עם זאת, נוספות in vitro ו- in vivo נדרשים מחקרים כדי לאשר את הפעילות הפונקציונלית ואת היעילות הטיפולית שלו.
מבוא
סרטן הערמונית הוא מחלה הטרוגנית, עם ביטויים קליניים הנעים בין נגעים ללא תסמינים שהתגלו בבדיקות סקר ועשויים שלא להתקדם לעולם, לבין גידולים ממאירים אגרסיביים, והוא מהווה סיבה מובילה לתחלואה ותמותה ברחבי העולם1,2. ברמה הגלובלית, מספר המקרים החדשים של סרטן הערמונית צפוי להכפיל את עצמו מ-1.4 מיליון בשנת 2020 ל-2.9 מיליון בשנת 2040, בעוד שמספר התמותות השנתי צפוי לעלות מ-375,000 בשנת 2020 לכ-700,000 בשנת 20403. סרטן הערמונית, המאובחן בתחילה כגידול ממאיר תלוי אנדרוגן, ניתן לטיפול באמצעות טיפול להורדת רמות אנדרוגן (androgen deprivation therapy). עם זאת, למרות תגובה ראשונית יעילה, המחלה מתקדמת באופן בלתי נמנע לצורה שאינה תלויה באנדרוגן. חולים עם סרטן ערמונית עמיד להורמונים נמצאים בסיכון מוגבר משמעותית לפיתוח גרורות בעצם, המובילות לנגעי שלד בעלי משמעות קלינית4,5,6,7. יתרה מכך, בעוד שסרטן ערמונית בשלב מוקדם ניתן לריפוי באמצעות ניתוח או רדיותרפיה, חולים רבים כבר מציגים מחלה מתקדמת מקומית או גרורתית במועד האבחנה, עבורן לא קיים כיום טיפול ריפואי8,9. לפיכך, קיים צורך דחוף בפיתוח חומרים יעילים וסלקטיביים ביותר למניעה ו/או לטיפול בגרורות של סרטן הערמונית.
מגוון של תמציות טבעיות, כגון ליקופן, מוצרי סויה, תה ירוק, פנולים מרימון, אפיגנין, וכן ויטמינים D ו-E, הוכחו כי הם מונעים ביעילות את התפתחות סרטן הערמונית10,11,12,13. פלומבגין (PLB), תרכובת נפטוכינון המופיעה באופן טבעי ונפוצה מאוד בטבע ומהווה מרכיב עיקרי ב-Plumbago zeylanica, בעלת תכונות אנטי-אינפקציוזיות14, אנטי-דלקתיות15, אנטי-אתרוסקלרוטיות16, ואנטי-גידוליות17,18. מחקרים הדגימו כי PLB מפעיל השפעות אנטי-גידוליות בסוגים שונים של תאי סרטן, כולל סרטן השד, סרטן ריאה מסוג non-small cell, סרטן הכבד, סרטן הלבלב, סרטן המעי הגס והחLרקטום, סרטן השחלה, סרטן הערמונית, גליומה ורטינובלסטומה19,20,21. ניסויי In vitro הראו כי PLB מעכב את השגשוג של תאי סרטן הערמונית22,23. PLB מווסת גם את ביטוי המיקרו-פרוטאין, אשר בתורו משפיע על התנהגויות תאיות מרובות בתאי סרטן הערמונית, כולל בקרת מחזור התא, אפופטוזיס, אוטופגיה ומעבר אפיתלי-מזנכימלי (EMT)24,25. בנוסף, PLB מעכב את הגדילה של תאי סרטן בלתי תלויים באנדרוגן במודלים של קסנוגרפט תת-עורי בעכברים22,26.
למרות שמספר רב של מחקרים הראה כי PLB מעכב את השגשוג וההתפשטות של תאי סרטן ערמונית, כיום אין חקירה שיטתית של המטרות והמסלולים שדרכם PLB פועל על תאים אלו. באמצעות פרמקולוגיה של רשתות, עגינה מולקולרית (molecular docking) וסימולציות של דינמיקה מולקולרית, מחקר זה ביקש להגדיר את המטרות והמסלולים הפוטנציאליים העומדים בבסיס ההשפעות הטיפוליות של PLB בסרטן הערמונית.
פרוטוקול
חיזוי וסריקה של מטרות פוטנציאליות של PLB
המידע על המבנה הכימי של PLB התקבל ממאגר הנתונים PubChem (https://pubchem.ncbi.nlm.nih.gov/). מטרות מולקולריות של PLB נחזו על בסיס דמיון דו-ממדי ותלת-ממדי מבוסס ליגנד באמצעות מאגרי הנתונים SwissTarget (https://swisstargetprediction.ch/index.php), SEA (https://sea.bkslab.org/), TargetNet (http://targetnet.scbdd.com/calcnet/index/), PharmMapper (https://www.lilab-ecust.cn/pharmmapper/index.html), Comparative Toxicogenomics Database (CTD, https://ctdbase.org/), Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP, https://www.tcmsp-e.com/index.php), ו-HERB (http://herb.ac.cn/). כדי להבטיח את מהימנות הנתונים והשחזור שלהם, הוחלו ספי סנן ספציפיים למסדי הנתונים כדלקמן: ב-TCMSP נשמרו מטרות עם זמינות ביולוגית דרך הפה (OB) ≥ 30% ודמיון לתרופה (DL) ≥ 0.18; ב-SwissTargetPrediction נשמרו רשומות עם הסתברות חיזוי ≥ 0.5; ב-PharmMapper נבחרו מטרות עם ציון התאמה מנורמל ≥ 4.0; ב-SEA נכללו רק מטרות עם E-value < 0.001 כמטרות מועשרות באופן מובהק; ב-TargetNet נשמרו מטרות עם הסתברות חיזוי > 0.5; ב-CTD נכללו רק מטרות עם ראיות מאושרות (המוסקות מאינטראקציות כימיות-גנטיות) וציון אינטראקציה > 0.3; וב-HERB נשמרו מטרות עם ציון נתמך בספרות ≥ 0.4. כל מזהי החלבונים שאחזרו ממאגרי הנתונים לעיל סטנדרטו לסמלי גנים רשמיים של HGNC לבני אדם באמצעות מאגר הנתונים UniProt (https://www.uniprot.org/), כאשר המינים הוגבלו ל-Homo sapiens. לאחר הסרת רשומות כפולות מכל המקורות, התקבלו סך הכל 500 מטרות ייחודיות הקשורות ל-PLB לצורך ניתוח המשך.
שליפת גנים הקשורים לסרטן הערמונית
גנים הקשורים למחלה עבור סרטן הערמונית הופקו מ-GeneCards (https://www.GeneCardss.org/), DrugBank (https://go.drugbank.com/), CTD ו-HERB. קריטריוני הכללה ספציפיים למסד הנתונים הוחלו כדי להבטיח את מהימנות הנתונים. ב-GeneCardss נשמרו גנים עם ציון רלוונטיות (relevance score) ≥ 0.5, מאחר שסף זה תופס גנים עם ראיות ברמה בינונית עד חזקה הקושרות אותם לשאילתת המחלה. DrugBank כלל רק רשומות עם ראיות ניסיוניות (למשל, תרופות מאושרות על ידי ה-FDA או תרופות במחקר לסרטן הערמונית) והסיר אינטראקציות שנחזו חישובית או תיאורטיות. CTD שמר רק רשומות עם רמות ראיות המסווגות כ-"marker" או "mechanism" בהתבסס על אינטראקציות מאושרות בין כימיקל-גן-מחלה. HERB כלל מטרות עם ציון ביטחון נתמך בספרות ≥ 0.4 כדי להבטיח ראיות ניסיוניות או ראיות מחשוב טקסט (text-mining) מספיקות. כל סמלי הגנים אוחדו לנומנקלטורת HGNC באמצעות מאגר המידע UniProt (https://www.uniprot.org/), כאשר המינים הוגבלו ל-Homo sapiens, וכפילויות הוסרו, מה שהניב 1,199 מטרות ייחודיות הקשורות לסרטן הערמונית לצורך ניתוח המשך.
זיהוי יעדים חופפים ותיקון של הערות קונפליקט
500 מטרות של PLB ו-1,199 מטרות של סרטן ערמונית הועברו לבדיקת חפיפה באמצעות סמלי HGNC סטנדרטיים בתוכנת Venny 2.1 (https://bioinfogp.cnb.csic.es/tools/venny/index.html), מה שהניב 151 מטרות מועמדות חופפות. כדי לפתור קונפליקטים של אנוטציה בין מאגרי נתונים שונים, הוטמע תהליך תיקון תלת-שלבי: (i) אי-עקביות בשמות נרדפים של גנים (gene aliases) אוחדה באמצעות כלי מיפוי של UniProt ID; (ii) גנים פאראלוגיים כפולים הוצאו באמצעות CD‑HIT עם סף דמיון רצפים של > 0.4; ו-(iii) אנוטציות תפקודיות סותרות נשמרו רק אם הן נתמכו על ידי לפחות שני מאגרי נתונים עצמאיים, בעוד שתיאורים סותרים ייחודיים ממקור בודד נפסלו.
בניית רשת וזיהוי מוקדי חיבור (Hubs)
רשת של אינטראקציות בין חלבונים (PPI) נבנתה על ידי הגשת המטרות החופפות למסד הנתונים STRING (גרסה 12.0, https://cn.string-db.org/), כאשר החיפוש הוגבל ל-Homo sapiens. רק אינטראקציות עם ציון ביטחון משולב של ≥ 0.700 נשמרו כדי להבטיח אמינות גבוהה, וכל הצמתים שחסרו קשרים כלשהם הוצאו מהרשת. רשת ה-PPI שנבנתה הוצגה באופן ויזואלי וננתחה טופולוגית ב-Cytoscape (גרסה 3.10.2), ולאחר מכן נקבעו הגנים המרכזיים (hub genes) באמצעות תוסף ה-cytoHubba, תוך שימוש ב-MCC (Maximal Clique Centrality) כאלגוריתם הדירוג העיקרי וב-Degree כמדד עזר לאימות צולב.
ניתוח העשראה תפקודית
ביצועהם של ניתוחי העשרה של מסלולים ב-Kyoto Encyclopedia of Genes and Genomes (KEGG) ואנוטציה תפקודית של Gene Ontology (GO) עבור הגנים בעלי הביטוי הדיפרנציאלי בוצעו באמצעות ה-Bioinformatics Online Analysis Platform (https://www.bioinformatics.com.cn, גישה אחרונה ב-May 4, 2026). הפלטפורמה משתמשת במבחן המדויק של פישר (Fisher's exact test) לחישוב ערכי P גולמיים, ושיטת Benjamini-Hochberg (BH) שימשה לתיקון בבדיקות מרובות כדי לשלוט בשיעור התגליות השגויות (FDR). מונחי GO (תהליך ביולוגי, רכיב תאי ותפקוד מולקולרי) ומסלולי KEGG עם FDR < 0.05 נחשבו להעשירה באופן מובהק.
עגינה מולקולרית (Molecular docking)
מבני גביש של חלבוני המטרה שנבחרו, המייצגים קונפורמציות פעילות, הושגו ממאגר הנתונים RCSB Protein Data Bank (https://www.rcsb.org/). הכנת החלבון בוצעה בתוכנת Discovery Studio, וכללה הסרה של מולקולות מים והטרואטומים, מחיקה של שרשראות עודפות, תיקון של שאריות חסרות, הוספה של אטומי מימן ב-pH 7.4, הקצאת מטעני Gasteiger ומזעור אנרגיה. כיס הקשירה הוגדר על בסיס קואורדינטות הליגנד שנמצאו בקו-גביש (co-crystallized), תוך שימוש ברשת שהקיפה את כל שאריות קישור הסובסטרט הקריטיות. עגינה מולקולרית (Molecular docking) של PLB בוצעה באמצעות שרת האינטרנט SwissDock (http://www.swissdock.ch/) באמצעות מודול Attracting Cavities. אנרגיות חופשיות של קישור חושבו כדי להעריך את הזיקה (affinity), והקונפורמציה בעלת האנרגיה הנמוכה ביותר עבור כל מטרה נבחרה כתנוחת העגינה הסופית. תוצאות סימולציות העגינה המולקולרית הוצגו ויזואלית לצורך תיקופן.
סימולציית דינמיקה מולקולרית
סימולציות דינמיקה מולקולרית (MD) בוצעו באמצעות GROMACS 2022.2. שדה הכוחות Amber14SB שימש לתיאור החלבון, כאשר המערכת סולבטה במים מסוג TIP3P. פרמטרים של Plumbagin, כולל מטענים חלקיים מסוג AM1-BCC וסוגי אטומים מסוג GAFF2, הופקו באמצעות Antechamber, ולאחריהם המרה של הטופולוגיה עם ACPYPE והקצאת פרמטרי יונים של Joung-Cheatham. כל קומפלקס חלבון-ליגנד הוטמע בתיבת סימולציה דודקאהדרלית קטועה עם מרחק מינימלי של 1.2 nm בין החלבון לדפנות התיבה, סולבטה במולקולות מים מסוג TIP3P, ונוטרלה על ידי הוספה של 0.15 M Na⁺/Cl⁻. לאחר מינימום אנרגיה באמצעות אלגוריתם הירידה התלולה ביותר (Fmax < 1,000 kJ·mol⁻1·nm⁻1), המערכת עברה שיווי משקל רצופים של NVT ו-NPT למשך 200 ps כל אחד בטמפרטורה של 298 K. סימולציות ייצור בוצעו לאחר מכן למשך 200 ns תחת תנאי NPT עם צעד זמן אינטגרציה של 2 fs תוך שימוש בסכימת ה-cutoff של Verlet. אינטראקציות אלקטרוסטטיות ארוכות-טווח חושבו בשיטת particle mesh Ewald (PME), בעוד שאינטראקציות אלקטרוסטטיות ואינטראקציות ואן דר ואלס השתמשו במרחק cutoff של 1.2 nm. אלגוריתם LINCS שימש לאילוץ קשרי מימן. הטמפרטורה נשמרה על 298 K באמצעות תרמוסטט Nosé-Hoover והלחץ על 1 bar באמצעות ברוסטט Parrinello-Rahman. קואורדינטות נשמרו בכל 10 ps לצורך ניתוחים עוקבים. ניתוח וויזואליזציה של המסלולים בוצעו באמצעות כלי GROMACS, VMD ו-PyMOL, בעוד שחישובים של אנרגיה חופשית של קשירה בשיטת MM-PBSA בוצעו עם gmx_MMPBSA במידת הצורך.
הערכת שיווי משקל של מסלולי דינמיקה מולקולרית ופרוטוקול דגימת אנרגיה חופשית בשיטת MM-PBSA
עבור כל קומפלקס של חלבון–plumbagin, בוצעה סימולציית דינמיקה מולקולרית של כל האטומים (all-atom) למשך 200 ns באמצעות GROMACS. נקודת הזמן של 100 ns הוגדרה כגבול ההתמצקות (equilibration boundary): המקטע של 0–100 ns הוגדר כשלב הרפיה קונפורמציונית, שבו עברו שלד החלבון וכיס קישור הליגנד התאמות קונפורמציוניות רציפות; המקטע של 100–200 ns זוהה כמישור יציבות תרמודינמי, כפי שהוכח מהיעדר סחף חד-כיווני ב-RMSD, רדיוס הגירציה (Rg), RMSF ברמת השאריות, SASA קבור של הליגנד, קשרי מימן בין-מולקולריים ואנרגיות אינטראקציה של ליגנד–רצפטור, שהראו תנודות קלות בלבד במצב יציב. כל הפרמטרים הקינטיים הכמותיים ואנרגיות קישור חופשיות מסוג MM/PBSA חושבו באופן בלעדי משלב שיווי המשקל של 100–200 ns, ממנו חולצו פריימים באופן אחיד בכל 100 ps, מה שהניב 1,000 תצלומיות שיווי משקל לכל מערכת עבור קלט ל-gmx_MMPBSA. 100 ה-ns הראשונים של מסלולי הרפיה נפסלו כדי למנוע הפרעות מסחף קונפורמציוני בחישובים של אנרגיה חופשית.
ניתוח פרוגנוסטי של גנים מטרה בסרטן הערמונית
ניתוחים פרוגנוסטיים בוצעו באמצעות מאגרי נתונים של סרטן ערמונית מ-The Cancer Genome Atlas (TCGA). נתוני ריצוף RNA (STAR-counts) ומידע קליני תואם הושגו מפורטל Genomic Data Commons (https://portal.gdc.cancer.gov). ספירות ביטוי גנים הומרו לטרנסקריפטים למיליון (TPM) ונורמלו באמצעות log2(TPM + 1). לאחר הסרת דגימות עם מידע קליני חסר, נכללו 498 מקרים בניתוח. רמת הביטוי החציונית של כל גן שימשה לחלוקת המטופלים לקבוצות של ביטוי גבוה ונמוך. ניתוח הישרדות Kaplan-Meier עם מבחן log-rank ורגרסיית סיכונים פרופורציונלית של Cox חד-משתנית בוצעו כדי להעריך הישרדות כוללת (OS) עבור SRC והישרדות ללא התקדמות מחלה (PFS) עבור MAPK3, כאשר דווחו יחסי סיכון (HRs) ומרווחי סמך (CIs) של 95%. ביצועי הניבוי הוערכו עוד יותר על ידי יצירת עקומות מאפייני תפעול מקלט (ROC) תלויות זמן בטווחים של 1, 3 ו-5 שנים. הניתוחים הסטטיסטיים בוצעו בתוכנת R גרסה 4.0.3, כאשר P < 0.05 נחשב למשמעותי סטטיסטית.
תוצאות
תוצאות חיזוי של PLB ומטרות לסרטן הערמומי
ה-PubChem CID של PLB הוא 10205, עם השם לפי IUPAC: 5-hydroxy-2-methylnaphthalene-1,4-dione, SMILES: CC1=CC(=O)C2=C(C1=O)C=CC=C2O, InChIKey: VCMMXZQDRFWYSE-UHFFFAOYSA-N, InChI: InChI=1S/C11H8O3/c1-6-5-9(13)10-7(11(6)14)3-2-4-8(10)12/h2-5,12H,1H3, משקל מולקולרי: 188.18, נוסחה מולקולרית: C11H8O3, מספר CAS: 481-42-5. לאחר הסרת כפילויות, מחקר זה חזה 500 מטרות פוטנציאליות עבור PLB באמצעות מאגרי המידע SwissTarget, SEA, TargetNet, PharmMapper, CTD, TCMSP ו-HERB (טבלה משלימה S1). לאחר הסרת כפילויות, נחזו 1,199 מטרות פוטנציאליות לסרטן הערמונית באמצעות מאגרי המידע GeneCards, DrugBank, TCMSP, CTD ו-HERB (טבלה משלימה S2).
מנגנון הפעולה של PLB בסרטן הערמומי כפי שחזוה באמצעות פרמקולוגיה של רשתות
דיאגרמת ון נבנתה כדי לנתח את החפיפה בין המטרות, וחשפה 151 מטרות חופפות (איור 1). לאחר מכן נבנתה רשת אינטראקציה בין חלבונים (PPI) עבור גנים חופפים אלו (איור 2), והיא הוצגה באופן ויזואלי לפי דרגת הצומת, כאשר צבע אדום כהה יותר וגודל צומת גדול יותר מצביעים על דרגה גבוהה יותר (איור 3). תוכנת Cytoscape שימשה לניתוח הגנים המטרים המרכזיים (20 המובילים) מבין הגנים החופפים, כאשר TP53 הראה את הדרגה הגבוהה ביותר של 112, ואחריו AKT1 עם דרגה של 111 (איור 4).
לאחר מכן, הגנים המשותפים הועלו למסד הנתונים DAVID לצורך ניתוחי העשרה של Gene Ontology (GO) ומסלולי KEGG. ניתוח ה-GO הניב 4,156 תהליכים ביולוגיים (Supplementary Table S3), 292 מרכיבים תאיים (Supplementary Table S4), ו-562 תפקודים מולקולריים (Supplementary Table S5). 10 המונחים המועשרים באופן המשמעותי ביותר בכל קטגוריה הוצגו באופן ויזואלי (Figure 5A-C). על פי ניתוח KEGG, 187 מסלולים היו מועשרים באופן משמעותי (Supplementary Table S6), ו-10 הרלוונטיים ביותר מתוכם מוצגים ב-Figure 5D. אלו כללו מסלולים הקשורים לסרטן הערמונית, הפטיטיס B, פרוטאוגליקנים בסרטן, עמידות למעכבי טירוזין קינאז של EGFR, מטבוליזם של ליפידים ואתרוסקלרוזיס, זיהום בציטומגלווירוס אנושי, סרטן המעי הגס והחלחול, עמידות אנדוקרינית, מסלול ה-AGE-RAGE בסיבוכים של סוכרת, ומסלול האותות PI3K-Akt.
מטרות ליבה של PLB בטיפול בסרטן הערמונית
ניתוח פרמקולוגיה של רשתות זיהה 151 גנים חופפים בין PLB לסרטן הערמונית. בהתבסס על רשת PPI, סיננו את 20 הגנים הפוטנציאליים למטרה מרכזית בעלי הקישוריות הגבוהה ביותר: חלבון הגומלה p53 (TP53), AKT serine/threonine kinase 1 (AKT1), signal transducer and activator of transcription 3 (STAT3), estrogen receptor 1 (ESR1), BCL2 apoptosis regulator (BCL2), interleukin 6 (IL6), epidermal growth factor receptor (EGFR), catenin beta 1 (CTNNB1), tumor necrosis factor (TNF), phosphatase and tensin homolog (PTEN), caspase 3 (CASP3), mitogen-activated protein kinase 3 (MAPK3), heat shock protein 90 alpha family class A member 1 (HSP90AA1), SRC proto-oncogene, non-receptor tyrosine kinase (SRC), peroxisome proliferator activated receptor gamma (PPARG), mechanistic target of rapamycin kinase (MTOR), heat shock protein 90 alpha family class B member 1 (HSP90AB1), glycogen synthase kinase 3 beta (GSK3B), prostaglandin-endoperoxide synthase 2 (PTGS2), ו-matrix metallopeptidase 9 (MMP9). TP53 הפגין את הקישוריות הגבוהה ביותר, ואחריו AKT1, מה שמרמז כי אלה עשויים להיות יעדים מרכזיים.
כדי לבחור את המטרות הסופיות לעיגון (docking) וסימולציות של דינמיקה מולקולרית, תיעדנו גנים המקודדים לחלבונים פרו-אונקוגניים בעלי מבנים גבישיים זמינים ותהליכי קישור מוגדרים, כולל AKT1, STAT3, ESR1, BCL2, IL6, EGFR, TNF, MAPK3, HSP90AA1, SRC, PPARG, MTOR, HSP90AB1, GSK3B, PTGS2, and MMP9. לעומת זאת, גנים מדכאי גידולים, כולל TP53, הוצאו מהבחירה מאחר שאינם עולים בקנה אחד עם האסטרטגיה הטיפולית של עיכוב המטרה.
לפיכך, נערכו מחקרי עגינה מולקולרית (molecular docking) נוספים. התוצאות הראו כי PLB מקשר עם AKT1 באמצעות TRP80, SER205, LEU210, LEU264 ו-LYS268, עם אנרגיית קשירה (BE) של -7.764 kcal/mol27; PLB מקשר עם STAT3 באמצעות GLU612, SER613, ARG609 ו-PRO639, עם BE של -5.149 kcal/mol28; PLB מקשר עם ESR1 באמצעות LEU346, PHE404, ALA350, LEU387 ו-LEU391, עם BE של -7.165 kcal/mol29; PLB מקשר עם BCL2 באמצעות LYS53, PHE54 ו-HIS50, עם BE של -5.564 kcal/mol30; PLB מקשר עם IL6 באמצעות GLN28, LYS27 ו-ARG24, עם BE של -4.462 kcal/mol31; PLB מקשר עם EGFR באמצעות LEU778, LEU707 ו-LEU789, עם BE של -6.255 kcal/mol32; PLB מקשר עם TNF באמצעות TYR59, GLY121 ו-LEU120, עם BE של -6.570 kcal/mol33; PLB מקשר עם MAPK3 באמצעות ALA69, VAL56, ILE48, LEU124, MET125 ו-LEU173, עם BE של -7.369 kcal/mol34; PLB מקשר עם HSP90AA1 באמצעות LEU107, PHE138, TYR139 ו-TRP162, עם BE של -8.947 kcal/mol35; PLB מקשר עם SRC באמצעות LEU276, TYR343, MET344, ALA296, LEU396 ו-VAL284, עם BE של -7.469 kcal/mol36; PLB מקשר עם PPARG באמצעות LEU330, ARG288, ILE326, MET329 ו-ALA292, עם BE של -6.538 kcal/mol37; PLB מקשר עם MTOR באמצעות ALA2073, SER2069 ו-HIS2024, עם BE של -4.672 kcal/mol38; PLB מקשר עם HSP90AB1 באמצעות TYR134, PHE133, TRP157 ו-LEU102, עם BE של -6.928 kcal/mol39; PLB מקשר עם GSK3B באמצעות VAL70, VAL135 ו-ALA83, עם BE של -6.799 kcal/mol40; PLB מקשר עם PTGS2 באמצעות VAL315, THR561, ARG311 ו-ILE558, עם BE של -5.081 kcal/mol41; PLB מקשר עם MMP9 באמצעות LEU187, ALA189, MET247, TYR248, LEU188, HIS226 ו-VAL223, עם BE של -7.101 kcal/mol42. למעט IL6 ו-MTOR, אנרגיות הקשירה של PLB עם החלבונים האחרים היו נמוכות מ- -5 kcal/mol, מה שמעיד על כך ש-PLB עשוי להיקשר בצורה יציבה לחלבונים אלו (Table 1).
בהמשך לכך, בוצעו סימולציות של דינמיקה מולקולרית כדי לנתח באופן מעמיק יותר את האינטראקציות של PLB עם חלבוני מטרה אלה ולהוכיח את יציבות הקישור. למרות שחלק מהתרכובות דורגו גבוה במדדי ה-docking, סימולציות ראשוניות של דינמיקה מולקולרית חשפו סחף מוקדם של הליגנד או עיוותים קונפורמציונליים חמורים במספר מערכות. לפיכך, השמטנו קומפלקסים לא יציבים אלו והשארנו רק את אלה ששמרו על תנוחות קישור עקביות לאחר הרפיה (relaxation) ראשונית, והמשכנו איתם כמועמדים לסימולציות דינמיקה מולקולרית מורחבות. המטרות הסופיות שנשמרו היו AKT1 (Supplementary File 1—Supplementary Figure S1), ESR1 (Supplementary File 1—Supplementary Figure S2), BCL2 (Supplementary File 1—Supplementary Figure S3), EGFR (Supplementary File 1—Supplementary Figure S4), TNF (Supplementary File 1—Supplementary Figure S5), MAPK3 (Supplementary File 1—Supplementary Figure S6), HSP90AA1 (Supplementary File 1—Supplementary Figure S7), SRC (Supplementary File 1—Supplementary Figure S8), ו-PPARG (Supplementary File 1—Supplementary Figure S9). לאחר 200 ns של סימולציה, ה-RMSD של מבני הקומפלקסים של PLB עם AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC, ו-PPARG התייצב בהדרגה במהלך הסימולציה (ראו Supplementary File 1—Supplementary Figure S1-S9, פאנל A). במקביל, מדדים כגון Rg (ראו Supplementary File 1—Supplementary Figure S1-S9, פאנל B), תנודה ממוצעת בריבוע (RMSF) (ראו Supplementary File 1—Supplementary Figure S1-S9, פאנל C), המרחק בין החלבון לאתר קישור הליגנד (Dock site-ligand) (ראו Supplementary File 1—Supplementary Figure S1-S9, פאנל D), שטח פנים נגיש לממס קבור (Buried SASA) (ראו Supplementary File 1—Supplementary Figure S1-S9, פאנל E), וחפיפה של קונפורמציית הקישור (ראו Supplementary File 1—Supplementary Figure S1-S9, פאנל F) התייצבו בהדרגה ככל שהסימולציה התקדמה. תוצאות אלו מצביעות על כך שקומפלקסי החלבון-ליגנד שמרו על יציבות מבנית לאורך הסימולציות. ה-RMSD, Rg, RMSF, המרחק בין החלבון לליגנד וה-buried SASA הגיעו בהדרגה לערכים יציבים, דבר המעיד על קומפלקס דחוס עם תנודות אטומיות מוגבלות ותפוסה מתמשכת של הליגנד בתוך כיס הקישור. בנוסף, שטח המגע בין פלומבגין (plumbagin) לבין החלבון נותר קבוע יחסית לאורך זמן. גם אינטראקציות ואן-דר-ואלס, הידרופוביות ואלקטרוסטטיות הראו פרופילים יציבים לאורך הסימולציות, מה שתומך עוד יותר ביציבות הכללית של קומפלקסי החלבון-פלומבגין (ראו Supplementary File 1—Supplementary Figure S1-S9, פאנל G).
בהתחשב באנרגיית הסולבציה (solvation energy) ובהערכה מקיפה של RMSD, Rg, מרחק, SASA קבור ואנרגיות אינטראקציה, נבחרו מסלולי קומפלקס במצב יציב כדי לחשב מונחים הקשורים ל-BE באמצעות שיטת MM-PBSA (Molecular Mechanics-Poisson Boltzmann Surface Area). כדי לספק מדדי ביטחון לדירוגי האפיניות שדווחו, כל האנרגיות החופשיות של קישור מדווחות כממוצע ± SEM שחושב מצילומי מצב (snapshots) שהוצאו ממסלולי MD ששרוויעו (Table 2). מבין אלה, AKT1 הראה את אנרגיית הקישור החופשית השלילית ביותר, ואחריו ESR1, HSP90AA1, SRC ו-PPARG, מה שמרמז כי PLB עשוי להיקשר באופן יציב לחלבונים מטרה אלה.
יתרה מכך, מחקר זה ניתח את השאריות המקשרות בין PLB לבין המטרות (מפורט ב-טבלה 3), ומצא כי PLB נקשר באופן יציב לחלבוני המטרה בעיקר באמצעות קשרי מימן (ראה קובץ משלים 1—איור משלים S1-S9, פאנל I), אינטראקציות הידרופוביות וכוחות ואן-דר-ואלס. על ידי ניתוח תרומתם של אנרגיות קישור של חומצות אמינו (ראה קובץ משלים 1—איור משלים S1-S9, פאנל H) והאינטראקציות בין החלבון ל-PLB, חשף מחקר זה כי: עבור AKT1, חומצות האמינו המרכזיות לקישור PLB הן TRP80 ו-LEU264, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני; עבור ESR1, חומצות האמינו המרכזיות הן LEU346 ו-LEU525, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, אינטראקציות הידרופוביות תפקיד משני, ואינטראקציות אלקטרוסטטיות תפקיד משלים; עבור BCL2, חומצות האמינו המרכזיות הן TYR108 ו-PHE104, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני; עבור EGFR, חומצות האמינו המרכזיות הן MET1002 ו-TYR998, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני; עבור TNF-α, חומצות האמינו המרכזיות הן TYR59 ו-HIE15, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני; עבור MAPK3, חומצות האמינו המרכזיות הן TYR53 ו-LEU173, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני; עבור HSP90AA1, חומצות האמינו המרכזיות הן PHE138 ו-LEU107, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני; עבור SRC, חומצות האמינו המרכזיות הן LEU276 ו-LEU396, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני; עבור PPARG, חומצות האמינו המרכזיות הן LEU330 ו-ILE326, כאשר כוחות ואן-דר-ואלס ממלאים את התפקיד המרכזי, ואינטראקציות אלקטרוסטטיות והידרופוביות ממלאות תפקיד משני.
כל מבני הגבישיים של החלבונים שנעשה בהם שימוש במחקר זה, למעט BCL2, גובשו במשותף עם מעכבים ידועים. כדי לתקף באופן נוסף את מהימנות גישת העגינה (docking) שלנו ואת פוטנציאל הקשירה של PLB, הגדרנו את כיסי הקשירה הפעילים על בסיס אתרי הקשירה של המעכבים המקוריים. הן PLB והן המעכבים הטבעיים הרלוונטיים עוגנו לאותם כיסים, ואנרגיות הקשירה החופשיות שלהם חושבו והושוו. עבור כל מטרה, רק תנוחות העגינה של המעכב הטבעי ששחזרו באופן קרוב את תצורת הקשירה הגבישית נלקחו בחשבון להשוואת האנרגיות. כפי שמוצג ב-טבלה 4, אנרגיות הקשירה החופשיות בעגינה של PLB היו דומות לאלו של המעכבים הטבעיים הרלוונטיים בכל שמונה המטרות, מה שמעיד על כך של-PLB יש זיקה (affinity) דומה לקשירה בכיס בדומה לתרכובות הפעילות המאומתות הללו. ממצא זה מצביע על כך ש-PLB, כמולקולת שלד (scaffold) חדשה, עשוי לשמש כתבנית כימית מבטיחה לפיתוח של סוכני אנטי-סרטן של הפרוסטטה המכוונים למרכזים אונקוגניים אלו.
ערך פרוגנוסטי של גנים מטרה בסרטן הערמונית
כמטרות מייצגות, הערכנו את המשמעות הפרוגנוסטית של SRC ו-MAPK3 בסרטן הערמונית באמצעות מערכי נתונים של TCGA. עבור SRC, ניתוח התפלגות הגרדיאנט הראה כי ביטוי גבוה יותר של SRC היה קשור לעלייה בתמותה ולזמני הישרדות קצרים משמעותית במעקב (איור 6A). ניתוח הישרדות קפלן-מייר (איור 6B) אישר כי לקבוצת הביטוי הגבוה הייתה הישרדות כוללת גרועה באופן ניכר מזו של קבוצת הביטוי הנמוך (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234). עקומות סיכון מצטבר הצביעו על סבירות גבוהה יותר למוות בכל נקודת זמן בקוהורט בעל ביטוי גבוה, מה שמזהה את SRC כגורם סיכון לפרוגנוזה גרועה. עקומות ROC תלויות-זמן (איור 6C) הראו ערכי AUC של 0.99, 0.878 ו-0.829 ב-1, 3 ו-5 שנים, בהתאמה, כאשר כולם עלו על 0.7, מה שמעיד על ביצועי ניבוי מצוינים הן להישרדות לטווח קצר והן להישרדות לטווח ארוך. יחד, ממצאים אלו מרמזים כי ביטוי גבוה של SRC עשוי לשמש כסמן מולקולרי עצמאי לפרוגנוזה לא חיובית בסרטן הערמונית.
עבור MAPK3, התפלגות הגרדיאנט גילתה כי ביטוי מוגבר היה קשור להתקדמות גדולה יותר של הגידול ולהישרדות חסרת התקדמות קצרה יותר, מה שמרמז ראשית על MAPK3 כגן סיכון פוטנציאלי (איור 7A). ניתוח הישרדות חסרת התקדמות לפי קפלן-מייר (איור 7B) הראה כי לקבוצה בעלת הביטוי הגבוה הייתה הישרדות חסרת התקדמות קצרה משמעותית מזו של הקבוצה בעלת הביטוי הנמוך (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046–2.391), כאשר חציון ההישרדות חסרת ההתקדמות היה רק 5.8 שנים בקבוצה בעלת הביטוי הגבוה. עקומות סיכון מצטבר תיקפו עוד יותר הסתברות גבוהה יותר להתקדמות בכל נקודת זמן. עם זאת, עקומות ROC תלויות זמן (איור 7C) חשפו ערכי AUC של 0.568, 0.563 ו-0.574 בלבד ב-1, 3 ו-5 שנים, כולם נמוכים משמעותית מ-0.7, מה שמעיד על כך של-MAPK3 לבדו יש ערך ניבוי עצמאי מוגבל עבור הסיכון להתקדמות סרטן ערמונית. באופן כללי, בעוד שביטוי גבוה של MAPK3 נמצא במתאם עם הישרדות חסרת התקדמות גרועה יותר בסרטן הערמונית, תועלתו כמדד פרוגנוסטי יחיד מוגבלת בשל דיוק ניבוי צנוע.
הצהרה על זמינות נתונים
התרומות המקוריות המוצגות במחקר זה כלולות במאמר או בחומרי ההשלמה.
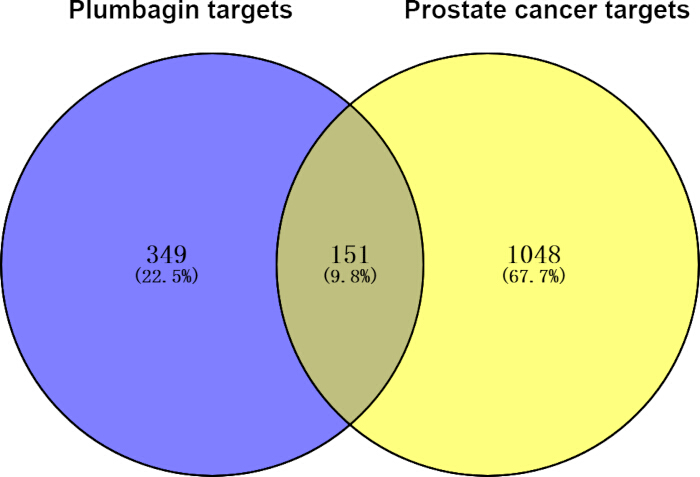
איור 1: חפיפה בין פלומבגין (plumbagin) לבין מטרות בסרטן הערמונית. כחול מייצג את מספר המטרות של הפלומבגין (plumbagin), וצהוב מייצג את מספר המטרות של סרטן הערמומיות.
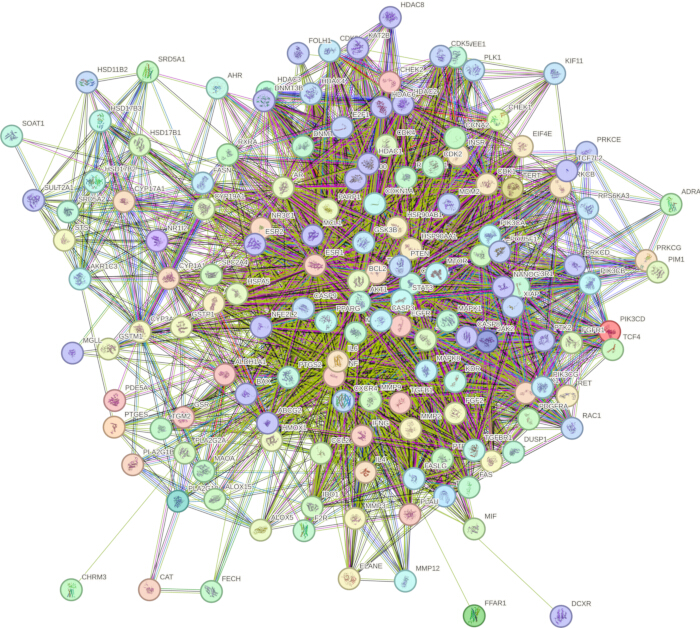
איור 2: רשת אינטראקציות חלבון-חלבון של 151 המטרות החופפות. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
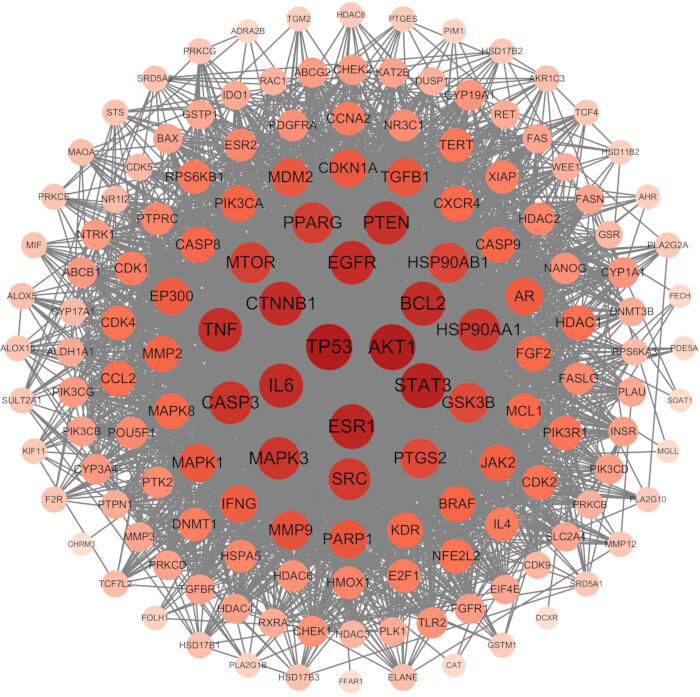
איור 3: ויזואליזציה של 151 יעדי הליבה על בסיס דרגת הצומת ברשת אינטראקציות חלבון-חלבון. גודל גדול יותר וצבע עמוק יותר של העיגולים מייצגים ערכי דרגה גבוהים יותר ברשת. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
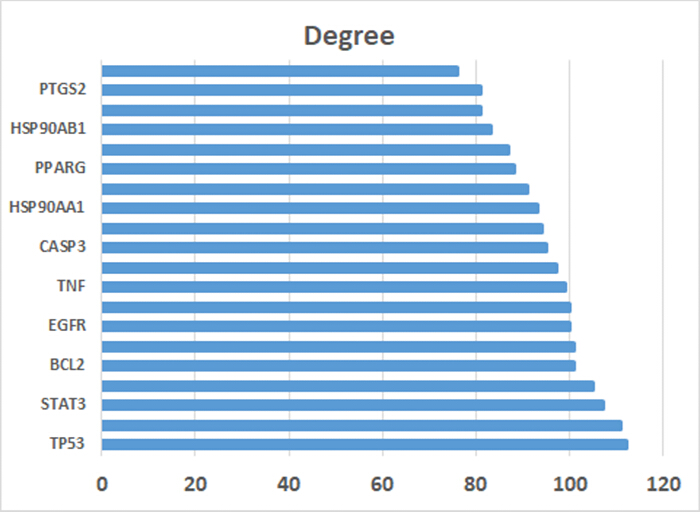
איור 4: ערכי הדרגה של 20 מטרות הליבה המובילות. אנא לחצו כאן כדי להצוגה של גרסה גדולה יותר של איור זה.
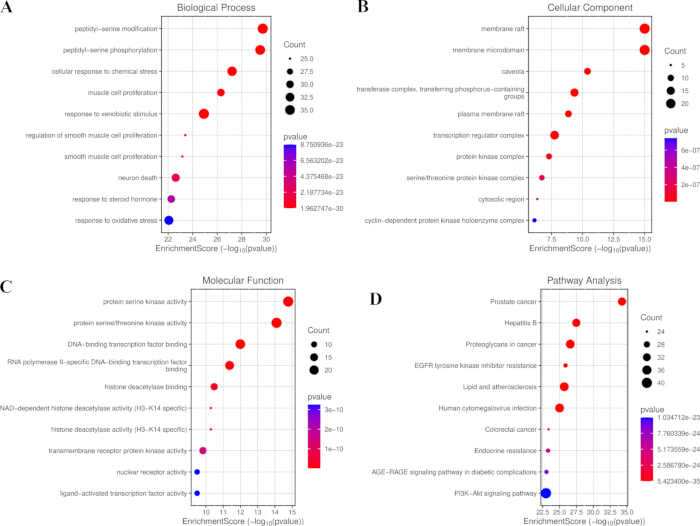
איור 5: ניתוח העשרה של 151 מטרות הליבה. (A) 10 המונחים המובילים בקטגוריית תהליך ביולוגי (biological process) של ניתוח GO, (B) 10 המונחים המובילים בקטגוריית רכיב התא (cellular component) של ניתוח GO, ו(פחמן10 המונחים המובילים בקטגוריית התפקוד המולקולרי (molecular function) של ניתוח GO.ד') 10 מסלולי ה-KEGG המעשירים ביותר מבין 151 יעדי הליבה. קיצורים: GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes. אנא לחצו כאן כדי להציג גרסה גדולה יותר של איור זה.
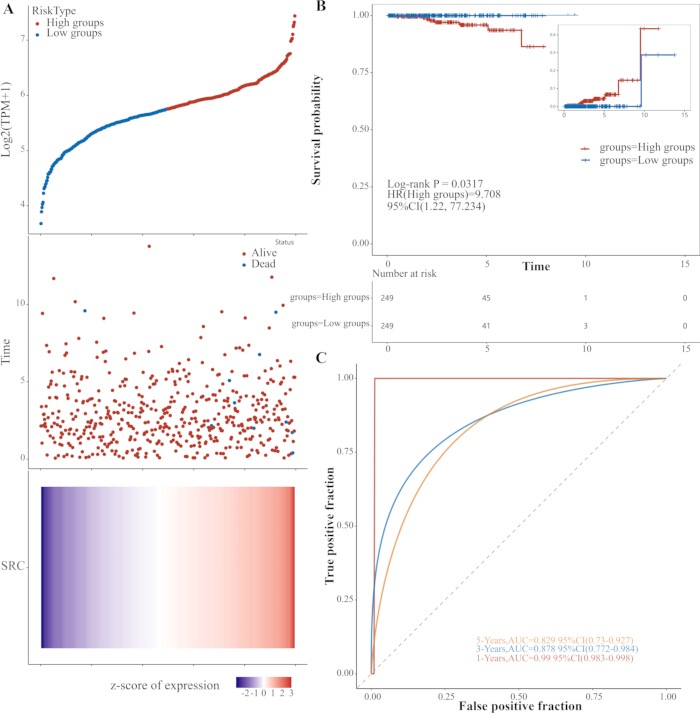
איור 6: ניתוח פרוגנוסטי של SRC בסרטן ערמונית (TCGA). (A) התפלגות גרדיאנט של ביטוי SRC לפי סטטוס הישרדות וזמן מעקב. (B) עקומות הישרדות כוללת לפי קפלן–מייר עבור קבוצות עם ביטוי SRC גבוה לעומת נמוך (Log-rank P = 0.0317, HR = 9.708, 95% CI: 1.22–77.234). (C) עקומות ROC תלויות זמן ב-1, 3 ו-5 שנים (AUC = 0.990, 0.878, ו-0.829). קיצורים: TCGA = The Cancer Genome Atlas; HR = hazard ratio; CI = confidence interval; ROC = receiver operating characteristic; AUC = area under the curve. אנא לחץ כאן כדי להציג גרסה גדולה יותר של איור זה.
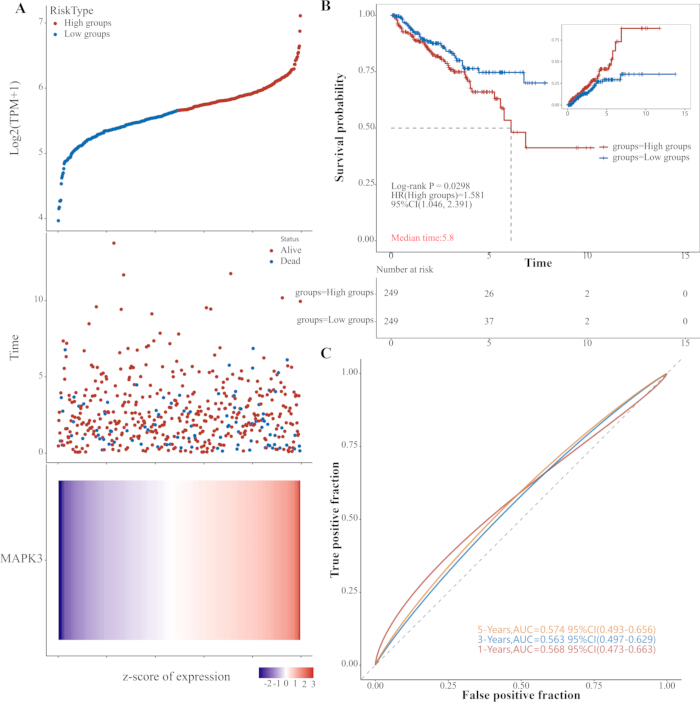
איור 7: ניתוח פרוגנוסטי של MAPK3 בסרטן ערמונית (TCGA). (Aהתפלגות מדרגית של MAPK3 ביטוי לפי סטטוס התקדמות וזמן ללא התקדמות. (B) עקומות הישרדות ללא התקדמות של Kaplan-Meier עבור MAPK3 קבוצות בעלות ביטוי גבוה לעומת ביטוי נמוך (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046-2.391). (C) עקומות ROC תלויות-זמן בנקודות זמן של שנה אחת, 3 שנים ו-5 שנים (AUC = 0.568, 0.563 ו-0.574). קיצורים: TCGA = The Cancer Genome Atlas; HR = יחס סיכון (hazard ratio); CI = רווח סמך (confidence interval); ROC = מאפייני מקלט תפעולי (receiver operating characteristic); AUC = השטח תחת העקומה (area under the curve). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
טבלה 1: אנרגיות קשירה ושאריות מגיבות של plumbagin בסימולציית עגינה מולקולרית (molecular docking) עם מולקולות מטרה מרכזיות. המקורות המצוטטים מתייחסים לרשומות מבנה ב-PDB (הקצאות של כיס קשירת ליגנד קריסטלוגרפי) ולא למחקרי תיקוף ביולוגיים, כאשר מזהי ה-PDB המתאימים מצוינים במפורש. אנא לחצו כאן להורדת טבלה זו.
טבלה 2: אנרגיות קישור ומרכיביהן של קומפלקסים של plumbagin-מטרה תחת תנאי מצב יציב (kJ/mol). בוצע מסלול (trajectory) בודד של 200 ns לכל קומפלקס עם גרעין מהירות אקראי בודד, ללא שכפול מקבילי. כל דגימת התשתיות (conformational sampling) הופקה מאזור המישור המאוזן (equilibrated plateau region) החולש על 100–200 ns של כל מסלול. ΔEele מייצגת את האינטראקציה האלקטרוסטטית בין המולקולה הקטנה לחלבון, ΔEvdw מייצגת את אינטראקציית ואן דר ואלס, ΔEpol היא אנרגיית סולבציה פולרית, שיכולה לייצג את האנרגיה הפוטנציאלית האלקטרוסטטית, ו-ΔEnonpol היא אנרגיית סולבציה בלתי פולרית, שיכולה לייצג את האינטראקציה ההידרופובית. ΔEMMPBSA = ΔEele + ΔEvdw + ΔEpol + ΔEnonpol. אנרגיית קישור גיבס, ΔGbind = ΔEMMPBSA + -TΔS. אנא לחצו כאן כדי להוריד טבלה זו.
טבלה 3: תרשים סכמטי של שאריות בעלות אינטראקציה מסימולציית דינמיקה מולקולרית של plumbagin עם חלבוני מטרה. אנא לחצו כאן כדי להוריד טבלה זו.
טבלה 4: Dאנרגיות חופשיות של קישור בסימולציית docking עבור פלומבגין (plumbagin) ומעכבים מקוריים שגובשו יחד עבור תשעת חלבוני המטרה. אנא לחץ כאן להורדת טבלה זו.
קובץ משלים 1: ניתוחי סימולציית דינמיקה מולקולרית של קומפלקסים של plumbagin עם AKT1, ESR1, BCL2, EGFR, TNF-α, MAPK3, HSP90AA1, SRC, ו-PPARG.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה S1: מטרות פוטנציאליות של PLB שנחזו על ידי מאגרי המידע SwissTarget, SEA, TargetNet, PharmMapper, CTD, TCMSP ו-HERB.אנא לחצו כאן כדי להוריד קובץ זה.
טבלה נלווית S2: מטרות פוטנציאליות של סרטן הערמונית שנחזו על ידי מאגרי המידע GeneCards, DrugBank, TCMSP, CTD ו-HERB.אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה S3: תהליכים ביולוגיים של GO המועשרים עבור 151 המטרות החופפות של PLB וסרטן הערמונית.אנא לחצו כאן כדי להוריד קובץ זה.
טבלה נלווית S4: רכיבי תא של GO המועשרים עבור 151 המטרות החופפות של PLB וסרטן הערמונית.אנא לחצו כאן כדי להוריד קובץ זה.
טבלה נלווית S5: תפקודי מולקולות של GO המועשירים את 151 המטרות החופפות של PLB וסרטן ערמונית.אנא לחצו כאן כדי להוריד קובץ זה.
טבלה משלימה S6: מסלולי KEGG שהועשרו באופן מובהק עבור 151 המטרות החופפות של PLB וסרטן הערמונית.אנא לחצו כאן להורדת קובץ זה.
דיון
מחקרים הראו כי AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC, ו-PPARG ממלאים תפקידים מגוונים בקידום התקדמות הסרטן. נתיב השליח phosphatidylinositol 3-kinase (PI3K)/serine/threonine protein kinase (AKT)/mechanistic target of rapamycin (mTOR) הוא נתיב העברה תאי קריטי המסדיר תהליכים פתופיזיולוגיים שונים, הכוללים צמיחת תאים, שגשוג, אפופטוזיס, אנגיוגנזה, תגובות דלקתיות וכימותקסיס43. AKT הוא קינאז מטרה חשוב במורד ה-PI3K, ו-p-AKT חיוני לנתיב השליח. p-AKT מפעיל את השפעותיו האנטי-אפופטוטיות על ידי הפעלת החלבון האנטי-אפופטוטי Bcl-2 והפחתת ההפעלה של החלבון הפרו-אפופטוטי Bax44. GSK3β הוא קינאז מרכזי ממשפחת ה-serine/threonine התאית ומולקולת מטרה חשובה במורד ה-AKT, המסדיר את מחזור התא, אפופטוזיס, פלישה/גרורות של תאים ואנגיוגנזה באמצעות השתתפות במסלולי שליח מרובים45. mTOR הוא קינאז פרוטאין serine/threonine שמור מאוד ומטרה במורד של נתיב השליח PI3K/AKT. AKT מבצע פוספורילציה של mTOR ליצירת p-mTOR ולהפעלתו, מה שמקדם לאחר מכן תרגום של mRNA ומסדיר פעילויות פיזיולוגיות כגון מטבוליזם של תאים, צמיחה, שגשוג והישרדות46.
EGFR והליגנדים שלו EGF ו-TGFα נוכחים הן בתאים שפירים והן בתאים ממאירים של הערמונית. האינטראקציה בין הליגנדים EGF/TGFα לבין EGFR ממלאת תפקיד חשוב בצמיחה ובפיתוח של הערמונית, כמו גם בהיווצרותה ובהתקדמותה של סרטן הערמונית47. Visacorpi et al.48 מצאו כי ביטוי גבוה של EGFR קשור קשר הדוק לסרטן ערמונית בדרגה גבוהה ולפרוגנוזה גרועה. Ibrahim et al.49 דיווחו כי ביטוי EGFR גבוה יותר ברקמות ערמונית נורמליות או היפרפלסטיות שפירות מאשר ברקמות של סרטן הערמונית. Davies et al.50 מצאו מתאם שלילי בין ביטוי קולטן אנדרוגן לבין זיקת קישור של EGF ל-EGFR בדגימות של סרטן ערמונית, מה שמרמז בעקיפין כי הפעלת מערכת השליח של EGF/EGFR מעורבת בפיתוחה ובהתקדמותה של סרטן ערמונית שאינו תלוי אנדרוגן.
מסלול ה-mitogen-activated protein kinase (MAPK), הידוע גם כקסקדת ה-RAS/RAF/MEK/ERK, הוא מסלול אותים קריטי המעורב בצמיחת תאים, שגשוגם והישרדותם. מוטציות ברכיבי הליבה שלו, הכוללים את RAS, RAF, MEK ו-ERK, נצפות לעיתים קרובות בסוגים שונים של סרטן ומשפיעות באופן משמעותי על התפתחות הגידול והתקדמותו51. אותי ה-MAPK מתווכים על ידי ERKs, שהם סרין/תראונין פרוטאין קינאזים המשמשים כמולקולות מפתח להעברת אותות המווסתות את העברת האותים מגורמי גדילה, הורמונים, מוליכים עצביים וגירויים חוץ-תאיים אחרים52. היפראקטיבציה של רכיבים במסלול זה, במיוחד באמצעות מוטציות או אותים שגויים, קשורה לסוגי סרטן רבים. הקינאזים שמעלה, MEK1/2, מפעילים ישירות את ERK1/2 בקצה הסופי של המסלול. ERK1/2 מופעלים מבצעים לאחר מכן פוספורילציה למגוון של סובסטראטים גרעיניים וציטופלזמיים, כולל פקטורי שעתוק ומולקולות רגולטוריות, ובכך מאיצים במהירות את הביטוי של גנים בתגובה מוקדמת השולטים בשגשוג תאים53,54. בסופו של דבר, חלבונים מופעלים אלו מקדמים את הביטוי של מולקולות אפקטורים במורד המסלול, מה שמעורר ומווסת טרנספורמציה אונקוגנית או שגשוג תאים בלתי נשלט. ביניהם, ERK1 (MAPK3), כקינאז קרוב במסלול האותים של MAPK/ERK, ממלא תפקיד מפתח בהעברת אותים תאיים וחיוני לוויסות תהליכים כגון שגשוג תאים, דיפרנציאציה והישרדות בסרטנים, כולל סרטן הערמונית55.
חלבוני הלם חום (HSPs) הם שפרונים מולקולריים המונעים פירוק של חלבוני המטרה שלהם. בסרטני אדם, HSPs מופרשים לעיתים קרובות ברמות גבוהות וקשורים באופן הדוק להתקדמות הגידול, ובכך תורמים לתהליכי קרצינוגנזה, אנגיוגנזה, עמידות לאפופטוזה וגרורות56,57. באמצעות שמירה על היציבות של חלבוני מטרה, כולל הקולטן לאנדרוגן (AR), הקולטן לאסטרוגן (ER) ו-MYC, HSPs מווסתים מסלולי איתות קריטיים כגון PI3K/Akt, JAK/STAT3, PKL1 ו-MAPK, ובסופו של דבר מקדמים צמיחה תאית בלתי נשלטת, אנגיוגנזה מתמשכת, חמיקה מאפופטוזה, פלישת גידול וגרורות58,59,60. HSP90, חבר מרכזי במשפחה זו, זוהה כמטרה טיפולית פוטנציאלית בסרטן הערמונית59,61,62. בתאי סרטן הערמונית, HSP90 מקייים אינטראקציה עם AR-FL ו-AR-V7 ומייצב אותם, ובכך שומר על יכולת קישור הליגנד שלהם; ביטוי של HSP90 נמצא במתאם חיובי עם התקדמות המחלה ועם רמות של AR-FL/AR-V763. עיכוב פרמקולוגי של HSP90 מקדם פירוק פרוטאוזומלי של AR-FL ו-AR-V7, ובכך מפחית את צמיחת הגידול והגרורות בתאי סרטן ערמונית העמידים לסירוס63. HSP90AA1 פועל כשפרון במהלך הפעלת AR, ועיכובו מדכא את מסלולי AKT/mTOR ו-PLK1. יתרה מכך, ירידה בביטוי של HSP90AA1 מפחיתה באופן משמעותי את נדידתם, פלישתם ושגשוגם של תאי סרטן הערמונית64.
ESR1 הוא אחד merכיביה של מערכת קולטני האסטרוגן הכפולה בבלוטת הערמונית האנושית. ESR1 מובע בעודד (upregulated) בנאופלזיה תוך-אפיתליאלית פרוסטטית בדרגה גבוהה (HGPIN), ככל הנראה על ידי תיווך ההשפעות הקרצינוגניות של אסטradiol, והוא מעורב בהתפתחות סרטן הערמומיות ובהתקדמות הגידול. מחקרים קליניים ראשוניים שבהם נעשה שימוש ב-toremifene, אנטגוניסט ל-ESR1, זיהו את ESR1 כמטרה מבטיחה למניעת סרטן הערמומיות. לשימוש באנטגוניסטים של ESR1 פוטנציאל רב למניעת סרטן הערמומיות ולעיכוב התקדמות המחלה.65.
PPARG, חבר במשפחת העל של הקולטנים הגרעיניים, הוא רגולטור מרכזי של תהליכים דלקתיים66. בעקבות הטרודימריזציה המושרה על ידי ליגנד עם קולטן רטינואיד X, PPARG נקשר לאלמנטים של תגובת PPAR ב-DNA כדי לווסת את השעתוק של גנים שונים. הפעלת PPARG מדכאת את השיוחות של NF-κB ו-MAPK, מפחיתה את ייצור ה-TNF-α וה-IL-6, ובכך מקלה על תגובות דלקתיות67. מחקרים קודמים הראו כי הת targeting של PPARG יכול לשמש לטיפול בסרטן הערמונית68. חלבון PTGS2 ממוקם באזור הפרי-גרעיני, קשור לממברנות הגרעין והרשת האנדופלזמית. הוא מובע במהירות בתאים נבחרים בעקבות גרייה ספציפית ומשתתף בתיווך תגובות דלקתיות69.
PLB הוא אחד מחומרי הלחימה המרכזיים בסרטן כנגד סוגים שונים של סרטן, כולל סרטן הערמונית, הריאות, השד, מלאנומה וסרטן השחלה19. PLB מפעיל את השפעותיו נגד סרטן על ידי אינטראקציה עם מטרות מרובות והשפעה על מסלולי איתות מרכזיים, כולל AMPK, NFκB, PI3K/AKT/mTOR ו-STAT3/PLK1/AKT, ובכך משרה אפופטוזה, עוצר את מחזור התא ומעכב גרורות ואנגיוגנזה19,70. PLB יכול גם להשרות אפופטוזה ולעכב פרוליפרציה ונדידה של תאי גידול על ידי הפחתת הפוטנציאל של ממברנת המיטוכונדריה, הגברת רמות ה-ROS והורדת הביטוי של חלבון Bcl-271,72. תוצאות אלו הצביעו על כך ש-PLB עשוי לווסת תהליכים תאיים מרובים, כולל את מחזור התא, אפופטוזה, יצירת מיני חמצן רהאקטיביים, אוטופגיה ואת מסלול ה-PI3K/Akt/mTOR. בהתחשב בתפקידו החיובי של מסלול האיתות PI3K/Akt/mTOR בפרוליפרציה של תאי או רקמות סרטן הערמונית, התמקדות במסלול זה הפכה לבחירה ברורה. יתרה מכך, Hafeez ואחרים דיווחו כי טיפול ב-PLB במודל עכברים עם נוקאאוט של PTEN לסרטן הערמונית עיכב את המעבר האפיתלי-מזנכימלי, ואת מסלולי STAT3 ו-AKT, אשר קריטיים להתקדמות סרטן הערמונית73.
הפוטנציאל התרגומי של PLB מושפע מהתכונות הפרמקוקינטיות שלו וממהזמינות הביולוגית שלו. כנפתוכינון ליפופילי מאוד, PLB מראה מסיסות מימית נמוכה וזמן מחצית חיסול קצר (35.89 ± 7.95 min) עם פינוי מהיר, דבר המגביל את יישומו הקליני74. עם זאת, פותחו מערכות הובלה שונות של תרופות כדי להתגבר על מגבלות אלו. ליפוזומים PEGylated האריכו את זמן מחצית החיים פי 36.38 (1,305.76 ± 278.16 min) ואת ה-AUC פי 3.13 בהשוואה ל-PLB חופשי, תוך שהם מראים יעילות אנטי-גידולית עדיפה והארכה של חציוני ההישרדות בעכברים עם מלנומה ללא רעילות משמעותית.74 אסטרטגיות אחרות, כולל מיקרוספירות כיטוזן (הארכה פי 22.2 של זמן מחצית החיים), ליפוזומים רגישים לטמפרטורה, וננו-חלקיקי זהב וננו-אמולסיות המצומדים ל-PLB, הראו באופן דומה פרופילים פרמקוקינטיים משופרים ופעילות אנטי-גידולית מוגברת75,76,77. חשוב לציין כי PLB מראה פרופיל בטיחות חיובי במודלים פרה-קליניים, ללא רעילות משמעותית שנצפתה בפרמטרים המטולוגיים או באיברים מרכזיים במינונים טיפוליים74. יחד, הממצאים החישובים שלנו מצביעים על כך ש-PLB עשוי לקיים אינטראקציה יציבה עם AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC, ו-PPARG, ובכך לווסת פוטנציאלית את פעילותם התפקודית ולהשפיע על תהליכים במורד המסלול, כולל צמיחת תאי סרטן, פרוליפרציה, אפופטוזיס, אנגיוגנזה, תגובות דלקתיות וכיmotaxis. בעוד שממצאים אלו הם בעלי אופי חישובי ויש לפרשם כמייצרים השערות, הראיות הפרה-קליניות הקיימות לפעילות האנטי-גידולית של PLB, יחד עם אסטרטגיות פורמולציה מתקדמות, מספקות רציונל חזק לתיקוף ניסיוני נוסף. מחקרי in vitro, in vivo ומחקרי קוהורט פרוספקטיביים עתידיים נדרשים כדי לאשר את האינטראקציות החזויות ואת הפוטנציאל הטיפולי של PLB בסרטן הערמונית.
המחקר הנוכחי מצא כי, בנוסף לאפשרות של ויסות מסלולים הכוללים AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ו-PPARG; ייתכן ש-PLB יקיים אינטראקציה עם חלבונים אלה, דבר העשוי להשפיע על פעילותם התפקודית ובכך להשפיע על תהליכים במסלולים מגיבים (downstream), כגון צמיחת תאי סרטן, פרוליפרציה, אפופטוזיס, אנגיוגנזה, תגובות דלקתיות וכיमोटקסיס. עם זאת, ממצאים אלו הם בעלי אופי חישובי ויש לפרשם כמייצרים היפותזות. המשך in vitro, in vivo, ומחקרי עוקבה פרוספקטיביים נדרשים כדי לתקף את האינטראקציות החזויות ולאשר את הפוטנציאל הטיפולי של PLB בסרטן הערמונית.
למרות התובנות בעלות הערך המסופקות על ידי פרמקולוגיה של רשתות וסימולציות של דינמיקה מולקולרית, למחקר זה מספר מגבלות. אנו מכירים בכך שהסתמכות על מאגרי מידע ציבוריים עלולה להוביל להטיות בשל חוסר אחידות באנוטציה של גנים ובכיסוי הספרות המקצועית. למרות שבוצע אימות צלבי באמצעות מספר מאגרי מידע כדי למזער בעיה זו, כל התחזיות החישוביות דורשות אישור ניסויי. יש לציין כי עבור כל קומפלקס בוצעה מסלול (trajectory) יחיד של 200 ns עם גרעין מהירות אקראי יחיד, ללא חזרות מקבילות. מגבלה זו עשויה להשפיע על החוסן הסטטיסטי של האנרגיות החופשיות בשיטת MM-PBSA, אם כי פחתנו זאת על ידי הארכת משך הסימולציה והשלכת ה-100 ns הראשונים כשלב שיווי משקל. לפיכך, יש לפרש את זיקות הקשירה המדווחות כהערכות איכותניות, וסימולציות חוזרות בעתיד יהיו בעלות ערך לצורך תיקוף. כניתוח חישובי טהור, מחקר זה חסר תיקוף in vitro או in vivo; לפיכך, הקשירה החזויה של PLB ל-AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC, ו-PPARG אינה מאשרת עיכוב תפקודי במערכות ביולוגיות. בנוסף, המחקר אינו עוסק בספציפיות למטרה, בזמינות ביולוגית תאית או בפרמקוקינטיקה in vivo. כדי לתקף או להחליף את הממצאים הנוכחיים, גישות ניסוייות חלופיות צריכות לכלול תהודה של פלסמונים שטחית (SPR) או קלורימטריה של טיטראציה איזותרמית כדי למדוד זיקת קשירה ישירה, בדיקות פעילות קינאז כדי לאשר עיכוב אנזימטי, western blotting להערכת סיגנלינג במורד הזרם (למשל, p-AKT, p-EGFR), ובדיקות תפקודיות מבוססות תאים (כגון MTT, ציטומטריה של זרימה) להערכת פרוליפרציה ואפופטוזיס בתאי סרטן ערמונית. יתרה מכך, השתקת מטרות בודדות באמצעות CRISPR-Cas9 או siRNA, יחד עם מודלים של קסנוגרפט בעכברים in vivo, חיוניים לביסוס תפקידים סיבתיים ורלוונטיות טיפולית. תיקופים ניסוייים אלו נחוצים כדי להתקדם מעבר לתחזיות חישוביות לעבר מסקנות בעלות משמעות ביולוגית.
לסיכום, באמצעות שימוש בפארמקולוגיה של רשתות, עגינה מולקולרית (molecular docking) וסימולציות של דינמיקה מולקולרית, מחקר זה suggests כי PLB עשוי לקיים אינטראקציה עם AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC ו-PPARG ולסנכרן את פעילותם, ובכך להשפיע על תפקודים ביולוגיים של תאי גידול. עם זאת, מכיוון שממצאים אלו הם חישוביים בלבד, יש לפרשם כיוצרים של היפותזות ולא כמסקנות סופיות. באופן כללי, תוצאותינו מספקות תובנות חדשות ובסיס תיאורטי למחקרי ניסויים עתידיים במיקנונים של PLB בטיפול בסרטן הערמונית, אם כי מחקרי in vitro ו-in vivo חיוניים כדי לאשש את השפעותיו העיכוביות בפועל ואת הפוטנציאל הטיפולי שלו.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מאגר הנתונים לטוקסיקוגנומיקה השוואית | המכון הלאומי למחקרים על בריאות הסביבה, המכון הלאומי להפרעות נוירולוגיות ושבץ מוחי | https://ctdbase.org/ | CTD הוא מאגר נתונים חסון וזמין לציבור, השואף לקדם את ההבנה לגבי האופן שבו חשיפות סביבתיות משפיעות על בריאות בני האדם. הוא מספק מידע שנאסף באופן ידני על אינטראקציות בין כימיקלים לגנים/חלבונים, ומערכות יחסים בין כימיקלים למחלות ובין גנים למחלות. נתונים אלו משולבים עם נתונים תפקודיים ונתוני מסלולים כדי לסייע בפיתוח היפותזות לגבי המנגנונים העומדים בבסיס מחלות המושפעות מהסביבה. |
| Cytoscape | המכון לביולוגיה של מערכות, ISB, לרוי הוד | https://cytoscape.org/ | התוכנה, שתוכננה בתחילה באופן ספציפי עבור רשתות אינטראקציה ביו-מולקולריות, התפתחה כעת לפלטפורמה רב-תכליתית לניתוח רשתות מורכבות, והיא מיושמת באופן נרחב בתחומים כגון ביו-אינפורמטיקה, רפואה מערכתית, רשתות חברתיות ורשתות סמנטיות. |
| מסד הנתונים DAVID | המכונים הלאומיים לבריאות (NIH) | https://davidbioinformatics.nih.gov/list.jsp | DAVID, קיצור של Database for Annotation, Visualization and Integrated Discovery, היא הפלטפורמה המקוונת החינמית הקלאסית והנפוצה ביותר לאנוטציה תפקודית של קבוצות גנים ולניתוח העשרה. |
| DrugBank | אוניברסיטת אלברטה, קנדה | https://go.drugbank.com/ | DrugBank היא מערכת ההפעלה המודיעינית עבור הביופארמה, המספקת את הידע הביו-רפואי המקיף והמובנה ביותר כדי לסייע בקידום טיפולים משלב הגילוי ועד להשפעה על המטופל |
| GeneCard | LifeMap Sciences | https://www.genecards.org/ | GeneCards הוא מאגר נתונים אינטגרטיבי הניתן לחיפוש, המספק מידע מקיף וידידותי למשתמש על כל הגנים האנושיים המאושרים (annotated) והחזויים. מאגר הידע משלב באופן אוטומטי נתונים ממוקדי-גנים מ-193 מקורות רשת, כולל מידע גנומי, טרנסקריפטומי, פרוטאומי, גנטי, קליני ופונקציונלי. |
| gmx_MMPBSA | אוניברסיטת קולומביה של מדיין | https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | gmx_MMPBSA, כלי חישוב אנרגיה חופשית בקוד פתוח שפותח על ידי Valdéנאמדה השיטה של s-Tresanco ואחרים לחישוב אנרגיות חופשיות של קישור (binding free energies) בהתבסס על מתודולוגיות MM/PBSA ו-MM/GBSA. הכלי מבוסס על מנוע ה-MMPBSA.py מתוך AmberTools, והוא מעבד ישירות קובצי מסלול (trajectory files) שנוצרו ב-GROMACS ללא צורך בהמרה ידנית של הפורמט. פירוק אנרגיה ברמת השאריות (Residue-wise energy decomposition), סריקת אלנין חישובית (computational alanine scanning) ותיקון אנטרופיה בוצעו כדי לכמת את תרומות הקישור של חומצות אמינו מרכזיות, והמודול המובנה gmx_MMPBSA_ana שימש לניתוח סטטיסטי ולהדמיה של רכיבי האנרגיה. |
| GROMACS | המכון המלכותי לטכנולוגיה (KTH), אוניברסיטת אופסלה | www.gromacs.org | GROMACS היא חבילה רב-תכליתית לביצוע דינמיקה מולקולרית, כלומר סימולציה של משוואות התנועה הניוטוניות עבור מערכות עם מאות עד מיליוני חלקיקים, והיא פרויקט המונע על ידי הקהילה. תרומות מתקבלות בדרכים רבות, כולל שיפורים בתיעוד, תיקוני באגים (patches), ייעוץ בפורומים, דיווחים על באגים המאפשרים לנו לשחזר את הבעיה, ופונקציונליות חדשה. |
| צמח מרפא | אוניברסיטת בייג'ינג לרפואה סינית, אוניברסיטת בייג'ינג לרפואה סינית. | http://herb.ac.cn/ | מאגר נתונים של רפואה סינית מסורתית המודרך על ידי ניסויים ורפרנסים בתפוקה גבוהה. |
| PharmMapper | בית הספר למדעי וטכנולוגיית הרוקחות / בית הספר למדעי המידע והנדסה, אוניברסיטת מזרח סין למדע וטכנולוגיה | https://www.lilab-ecust.cn/pharmmapper/index.html | שרת PharmMapper הוא שרת אינטרנט הנגיש בחינם, שנועד לזהות מועמדים פוטנציאליים למטרות עבור מולקולות קטנות המשמשות כגששים (תרופות, תוצרי טבע או תרכובות חדשות שהתגלו שטרם זוהו מטרות הקשירה שלהן), וזאת באמצעות גישה של מיפוי פרמקופור. הודות לשיטת מיפוי יעילה וחזקה ביותר, PharmMapper בעל יכולת עיבוד גבוהה ויכול לזהות מועמדים פוטנציאליים למטרות מתוך מאגר הנתונים בתוך מספר שעות. |
| PubChem | המכונים הלאומיים לבריאות (NIH) | https://pubchem.ncbi.nlm.nih.gov/ | PubChem הוא מאגר נתונים פתוח לכימיה במכוני הבריאות הלאומיים (NIH) |
| PyMOL | שריברöדינגר | https://pymol.org | PyMOL, שפותחה במקור על ידי Warren Lyford DeLano ומתוחזקת כיום על ידי SchröPyMOL, מבית Schrödinger, Inc., הוא כלי ויזואליזציה מולקולרית רב-פלטפורמי המאומץ באופן נרחב בביולוגיה מבנית ובגילוי תרופות באמצעות סיוע מחשוב. מבני קומפלקס חלבון-ליגנד שהורדו מ-RCSB PDB נטענו ל-PyMOL כדי להציג קונפורמציות קישור, קשרי מימן ושיירי חומצה אמינית מרכזיים המשתתפים באינטראקציה. סופרפוזיציה מבנית, רינדור פני שטח וגרפיקה מולקולרית ברזולוציה גבוהה באיכות פרסום הופקו באמצעות ממשק הסקריפטים המובנה של Python. |
| RCSB Protein Data Bank | מעבדה שיתופית למחקר בביואינפורמטיקה מבנית | https://www.rcsb.org/ | RCSB PDB (Research Collaboratory for Structural Bioinformatics Protein Data Bank) משמש כמרכז הנתונים של ארה"ב בתוך קונסורציום Worldwide Protein Data Bank (wwPDB), אשר הוקם בהובלתה של Helen M. Berman בשנת 1998. הוא מארכב מבנים אטומיים תלת-ממדיים של חלבונים, חומצות גרעיניות ומקומפלקסים שלהם שנקבעו באופן ניסויי באמצעות קריסטלוגרפיה של קרני X, מיקרוסקופיה אלקטרונית בקריו (cryo-electron microscopy) וספקטרוסקופיית NMR, וכן משלב מיליוני מודלים של מבני חלבונים שנחזו באמצעות בינה מלאכותית מ-AlphaFold. פורטל האינטרנט תומך בחיפוש רב-ממדי, ויזואליזציה מולקולרית תלת-ממדית בזמן אמת, הורדה של קובצי קואורדינטות במנות (batch), והערות הפניה (cross-reference) המקשרות נתונים מבניים לתפקוד גנים, למחלות ולליגנדים של מולקולות קטנות, המשמשים באופן נרחב לזיהוי מטרות ולמחקרי עגינה מולקולרית (molecular docking). |
| ניתוח רצפים של איברים (SEA) | מעבדת שואיכט (Shoichet) במחלקה לכימיה תרופתית באוניברסיטת קליפורניה, סן פרנסיסקו (UCSF) | https://sea.bkslab.org/ | גישת תבנית הדמיון (Similarity Ensemble Approach - SEA) מקשרת בין חלבונים על בסיס הדמיון הכימי של קבוצות הליגנדים שלהם. ניתן להשתמש בגישה זו לחיפוש מהיר במאגרי תרכובות גדולים ולבניית מפות דמיון בין מטרות שונות. |
| מאגר הנתונים STRING | הקואליציה העולמית לביודאטה (Global Biodata Coalition) ו-ELIXIR. | https://cn.string-db.org/ | STRING הוא מאגר נתונים של אינטראקציות ידועות וצפויות בין חלבונים. האינטראקציות כוללות קשרים ישירים (פיזיים) ועקיפים (פונקציונליים); הן נובעות מניבוי חישובי, מהעברת ידע בין אורגניזמים, ומאינטראקציות שנאספו ממאגרי נתונים אחרים (ראשוניים). |
| שרת האינטרנט SwissDock | קבוצת המידול המולקולרי של אוניברסיטת לוזאן ושל SIB Swiss Institute of Bioinformatics | https://www.swissdock.ch/ | SwissDock הוא שירות רשת החוזה את האינטראקציות המולקולריות שסבירות להתרחש בין חלבון מטרה לבין מולקולה קטנה. |
| SwissTarget | קבוצת המידול המולקולרי של ה-SIB | המכון השוויצרי לביואינפורמטיקה | https://swisstargetprediction.ch/index.php | אתר זה מאפשר להעריך את המטרות המקרו-מולקולריות הסבירות ביותר של מולקולה קטנה, הנחשבת לפעילה ביולוגית. החיזוי מבוסס על שילוב של דמיון דו-ממדי (2D) ותלת-ממדי (3D) עם ספרייה של 370,000 חומרים פעילים ידועים על פני יותר מ-3,000 חלבונים משלושה מינים שונים. |
| TargetNet | ביולוגיה חישובית & קבוצת תכנון תרופות | http://targetnet.scbdd.com/calcnet/index/ | TargetNet הוא שרת אינטרנט פתוח שניתן להשתמש בו למיפוי (netting) או לחיזוי של קישור למספר מטרות עבור כל מולקולה נתונה. |
| מאגר נתונים ופלטפורמה לניתוח פרמקולוגיה של מערכות ברפואה סינית מסורתית | Zhejiang Jiwei Health Co., Ltd | https://www.tcmsp-e.com/index.php | TCMSP היא פלטפורמת פרמקולוגיה מערכתית ייחודית של תרופות צמחים סיניות, הממפה את הקשרים בין תרופות, מטרות ומחלות. מסד הנתונים כולל כימיקלים, מטרות ורשתות של תרופה-מטרה, וכן רשתות תרופה-מטרה-מחלה נלוות, לצד תכונות פרמקוקינטיות של תרכובות טבעיות הכוללות זמינות ביולוגית דרך הפה, דמיון לתרופה (drug-likeness), חדירות של אפיתל המעי ומעבר ממחסום הדם-מוח. מסיסות במים וכדומה. פריצת דרך זו עוררה עניין מחודש בחיפוש אחר תרופות מועמדות בסוגים שונים של צמחי מרפא סיניים מסורתיים. |
| מאגר הנתונים UniProt | המכון האירופי לביואינפורמטיקה (EMBL-EBI), המכון השוויצרי לביואינפורמטיקה (SIB) ומאגר מידע על חלבונים (PIR) | https://www.uniprot.org/ | UniProt הוא המאגר העולמי’משאב מוביל, איכותי, מקיף ונגיש בחינם של מידע על רצפי חלבונים ותפקודם |
| הכלי המקוון Venny 2.1 | המרכז הלאומי לביוטכנולוגיהíא', (CNB-CSIC) | https://bioinfogp.cnb.csic.es/tools/venny/index.html | Venny מורכב מקובץ html סטנדרטי יחיד. ניתן לשמור אותו בכונן הקשיח, לפתוח אותו באמצעות הדפדפן המועדף עליכם ולהתחיל לצייר דיאגרמות ונ נאות בתוך שניות, גם ללא חיבור לאינטרנט. |
| VMD | קבוצת המחקר בביופיזיקה תיאורטית וחישובית (TCBG) במכון בקמן, אוניברסיטת אילינוי באורבנה-שמפיין, ארה"ב | VMD (Visual Molecular Dynamics) היא חבילה של תוכנות להצגה ויזואלית, עיבוד והניתוח של נתונים מולקולריים. היא משמשת להצגת מבנים אטומים, סימולציות של דינמיקה מולקולרית (MD) ונתונים ממקורות שונים, כגון קריסטלוגרפיה של קרני רנטגן, NMR וסימולציות חישוב. VMD תוכננה כדי לספק ממשק גרפי אינטואיטיבי המאפשר למשתמשים להציג ולנתח מערכות מולקולריות גדולות ומורכבות בצורה יעילה. היא תומכת במגוון רחב של פורמטים של קבצים ומספקת כלים מובנים לניתוח מבני, כולל חישוב מרחקים, זוויות, רדיוסים של גיration (רדיוס ג'יריציה) וניתוח של קשרי מימן. אחד המאפיינים המרכזיים של VMD הוא היכולת להרחיב את פונקציונליות התוכנה באמצעות שפות תכנות. VMD כוללת מפרש Tcl/Tk מובנה, המאפשר למשתמשים ליצור סקריפטים לאוטומציה של משימות, פיתוח פקודות חדשות ויצירת ממשקי משתמש מותאמים אישית. בנוסף, ניתן להוסיף פלאגינים שנכתבו ב-C או ב-Fortran כדי לשפר את ביצועי החישוב. VMD מיועדת לשימוש במחשבים אישיים (Workstations) ובמחשבי על (Clusters), והיא תומכת בהצגה תלת-ממדית מואצת באמצעות כרטיסי גרפיקה (GPU) כדי לאפשר אינטראקציה חלקה עם מולקולות ענקיות. | VMD (Visual Molecular Dynamics) היא תוכנה חופשית רב-פלטפורמית לוויזואליזציה מולקולרית וניתוח מסלולים (trajectory analysis), שפותחה על ידי קבוצת הביופיזיקה התאורטית והחישובית בהובלת פרופסור Klaus Schulten באוניברסיטת אילינוי אורבנה-שמפיין. התוכנה תומכת במבני PDB סטנדרטיים ובמסלולי MD שנוצרו באמצעות GROMACS, NAMD ו-Amber, ומציעה סגנונות רינדור מולקולריים מגוונים וממשק תסריט (scripting) מובנה בשפת Tcl. ניתוחים כמותיים, הכוללים RMSD, תפוסת קשרי מימן, SASA וגיאומטריית כיס קישור של ליגנדים, בוצעו כדי לאפיין אינטראקציות דינמיות בין חלבון לליגנד ותנודות קונפורמציוניות. |
מקורות
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Loeb S, et al. Overdiagnosis and overtreatment of prostate cancer. Eur Urol. 2014;65(6):1046-55.
- James ND, et al. The Lancet Commission on prostate cancer: planning for the surge in cases. Lancet. 2024;403(10437):1683-722.
- Bussard KM, Gay CV, Mastro AM. The bone microenvironment in metastasis: what is special about bone? Cancer Metastasis Rev. 2008;27(1):41-55.
- Keller ET, et al. New trends in the treatment of bone metastasis. J Cell Biochem. 2007;102(5):1095-102.
- Kingsley LA, Fournier PG, Chirgwin JM, Guise TA. Molecular biology of bone metastasis. Mol Cancer Ther. 2007;6(10):2609-17.
- Valdespino V, Tsagozis P, Pisa P. Current perspectives in the treatment of advanced prostate cancer. Med Oncol. 2007;24(3):273-86.
- Albertsen P. Predicting survival for men with clinically localized prostate cancer: what do we need in contemporary practice? Cancer. 2008;112(1):1-3.
- So A, Gleave M, Hurtado-Col A, Nelson C. Mechanisms of the development of androgen independence in prostate cancer. World J Urol. 2005;23(1):1-9.
- Gupta S. Prostate cancer chemoprevention: current status and future prospects. Toxicol Appl Pharmacol. 2007;224(3):369-76.
- Patel D, Shukla S, Gupta S. Apigenin and cancer chemoprevention: progress, potential, and promise. Int J Oncol. 2007;30(1):233-45.
- Kallifatidis G, Hoy JJ, Lokeshwar BL. Bioactive natural products for chemoprevention and treatment of castration-resistant prostate cancer. Semin Cancer Biol. 2016;40-41:160-9.
- Montuori E, et al. Marine natural products with activities against prostate cancer: recent discoveries. Int J Mol Sci. 2023;24(2):1435.
- de Paiva SR, Figueiredo MR, Aragão TV, Kaplan MAC. Antimicrobial activity in vitro of plumbagin isolated from Plumbago species. Mem Inst Oswaldo Cruz. 2003;98(7):959-61.
- Luo P, et al. Anti-inflammatory and analgesic effect of plumbagin through inhibition of nuclear factor-κB activation. J Pharmacol Exp Ther. 2010;335(3):735-42.
- Sharma I, Gusain D, Dixit VP. Hypolipidaemic and antiatherosclerotic effects of plumbagin in rabbits. Indian J Physiol Pharmacol. 1991;35(1):10-4.
- Awale S, et al. Targeting pancreatic cancer with novel plumbagin derivatives: design, synthesis, molecular mechanism, in vitro and in vivo evaluation. J Med Chem. 2023;66(12):8054-65.
- Zhang R, Jiang Q, Guo R, Guo K, Qiu J. Unveiling the power of plumbagin: revitalizing exhausted T cells to combat tongue cancer. Cancer Cell Int. 2025;25(1):271.
- Panichayupakaranant P, Ahmad MI. Plumbagin and its role in chronic diseases. Adv Exp Med Biol. 2016;929:229-46.
- Kuete V, et al. Cytotoxicity of plumbagin, rapanone, and 12 other naturally occurring quinones from Kenyan flora towards human carcinoma cells. BMC Pharmacol Toxicol. 2016;17(1):60.
- Gharbaran R, Shi C, Onwumere O, Redenti S. Plumbagin induces cytotoxicity via loss of mitochondrial membrane potential and caspase activation in metastatic retinoblastoma. Anticancer Res. 2021;41(10):4725-32.
- Aziz MH, Dreckschmidt NE, Verma AK. Plumbagin, a medicinal plant-derived naphthoquinone, is a novel inhibitor of the growth and invasion of hormone-refractory prostate cancer. Cancer Res. 2008;68(21):9024-32.
- Powolny AA, Singh SV. Plumbagin-induced apoptosis in human prostate cancer cells is associated with modulation of cellular redox status and generation of reactive oxygen species. Pharm Res. 2008;25(9):2171-80.
- Qiu JX, et al. Plumbagin elicits differential proteomic responses mainly involving cell cycle, apoptosis, autophagy, and epithelial-to-mesenchymal transition pathways in human prostate cancer PC-3 and DU145 cells. Drug Des Devel Ther. 2015;9:349-417.
- Wang F, et al. Plumbagin induces cell cycle arrest and autophagy and suppresses epithelial-to-mesenchymal transition involving the PI3K/Akt/mTOR-mediated pathway in human pancreatic cancer cells. Drug Des Devel Ther. 2015;9:537-60.
- Lai L, et al. Plumbagin inhibits tumour angiogenesis and tumour growth through the Ras signalling pathway following activation of the VEGF receptor-2. Br J Pharmacol. 2012;165(4b):1084-96.
- Wu WI, et al. Crystal structure of human AKT1 with an allosteric inhibitor reveals a new mode of kinase inhibition. PLoS One. 2010;5(9):e12913.
- Bai L, et al. A potent and selective small-molecule degrader of STAT3 achieves complete tumor regression in vivo. Cancer Cell. 2019;36(5):498-511.e17.
- Fanning SW, et al. The SERM/SERD bazedoxifene disrupts ESR1 helix 12 to overcome acquired hormone resistance in breast cancer cells. Elife. 2018;7:e37161.
- Suraweera CD, Caria S, Järvå M, Hinds MG, Kvansakul M. A structural investigation of NRZ-mediated apoptosis regulation in zebrafish. Cell Death Dis. 2018;9(10):967.
- Boulanger MJ, Chow DC, Brevnova EE, Garcia KC. Hexameric structure and assembly of the interleukin-6/IL-6 α-receptor/gp130 complex. Science. 2003;300(5628):2101-4.
- Jia Y, et al. Overcoming EGFR(T790M) and EGFR(C797S) resistance with mutant-selective allosteric inhibitors. Nature. 2016;534(7605):129-32.
- Dos Santos Nascimento IJ, da Silva-Júnior EF. TNF-α inhibitors from natural compounds: an overview, CADD approaches, and their exploration as anti-inflammatory agents. Comb Chem High Throughput Screen. 2022;25(14):2317-40.
- Chaikuad A, et al. A unique inhibitor binding site in ERK1/2 is associated with slow binding kinetics. Nat Chem Biol. 2014;10(10):853-60.
- Brasca MG, et al. Discovery of NMS-E973 as a novel, selective, and potent inhibitor of heat shock protein 90. Bioorg Med Chem. 2013;21(22):7047-63.
- Gurbani D, et al. Structure and characterization of a covalent inhibitor of Src kinase. Front Mol Biosci. 2020;7:81.
- Gellrich L, et al. L-thyroxin and the nonclassical thyroid hormone TETRAC are potent activators of PPARγ. J Med Chem. 2020;63(13):6727-40.
- Weng Z, Shen X, Zheng J, Liang H, Liu Y. Structural basis of DEPTOR to recognize phosphatidic acid using its tandem DEP domains. J Mol Biol. 2021;433(13):166989.
- Huck JD, et al. Structures of Hsp90α and Hsp90β bound to a purine-scaffold inhibitor reveal an exploitable residue for drug selectivity. Proteins. 2019;87(10):869-77.
- Luo G, et al. Discovery of isonicotinamides as highly selective, brain-penetrable, and orally active glycogen synthase kinase-3 inhibitors. J Med Chem. 2016;59(3):1041-51.
- Orlando BJ, Malkowski MG. Crystal structure of rofecoxib bound to human cyclooxygenase-2. Acta Crystallogr F Struct Biol Commun. 2016;72(Pt 10):772-6.
- Nuti E, et al. Development of thioaryl-based matrix metalloproteinase-12 inhibitors with alternative zinc-binding groups: synthesis, potentiometric, NMR, and crystallographic studies. J Med Chem. 2018;61(10):4421-35.
- Li Q, Li Z, Luo T, Shi H. Targeting the PI3K/AKT/mTOR and RAF/MEK/ERK pathways for cancer therapy. Mol Biomed. 2022;3(1):47.
- Wang B, et al. Propofol protects against hydrogen peroxide-induced injury in cardiac H9c2 cells via Akt activation and Bcl-2 up-regulation. Biochem Biophys Res Commun. 2009;389(1):105-11.
- Majewska E, Szeliga M. AKT/GSK3β signaling in glioblastoma. Neurochem Res. 2017;42(3):918-24.
- Yang H, et al. mTOR kinase structure, mechanism, and regulation. Nature. 2013;497(7448):217-23.
- Fong CJ, Sherwood ER, Mendelsohn J, Lee C, Kozlowski JM. Epidermal growth factor receptor monoclonal antibody inhibits constitutive receptor phosphorylation, reduces autonomous growth, and sensitizes androgen-independent prostatic carcinoma cells to tumor necrosis factor α. Cancer Res. 1992;52(21):5887-92.
- Visakorpi T, Kallioniemi OP, Koivula T, Harvey J, Isola J. Expression of epidermal growth factor receptor and ERBB2 (HER-2/Neu) oncoprotein in prostatic carcinomas. Mod Pathol. 1992;5(6):643-8.
- Ibrahim GK, et al. Differential immunoreactivity of epidermal growth factor receptor in benign, dysplastic, and malignant prostatic tissues. J Urol. 1993;149(1):170-3.
- Davies P, Eaton CL. Binding of epidermal growth factor by human normal, hypertrophic, and carcinomatous prostate. Prostate. 1989;14(2):123-32.
- Bahar ME, Kim HJ, Kim DR. Targeting the RAS/RAF/MAPK pathway for cancer therapy: from mechanism to clinical studies. Signal Transduct Target Ther. 2023;8(1):455.
- Guo YJ, et al. ERK/MAPK signalling pathway and tumorigenesis. Exp Ther Med. 2020;19(3):1997-2007.
- Ullah R, Yin Q, Snell AH, Wan L. RAF-MEK-ERK pathway in cancer evolution and treatment. Semin Cancer Biol. 2022;85:123-54.
- Chambard JC, Lefloch R, Pouysségur J, Lenormand P. ERK implication in cell cycle regulation. Biochim Biophys Acta. 2007;1773(8):1299-310.
- Gesmundo I, et al. Proton pump inhibitors promote the growth of androgen-sensitive prostate cancer cells through ErbB2, ERK1/2, PI3K/Akt, GSK-3β signaling and inhibition of cellular prostatic acid phosphatase. Cancer Lett. 2019;449:252-62.
- Schopf FH, Biebl MM, Buchner J. The HSP90 chaperone machinery. Nat Rev Mol Cell Biol. 2017;18(6):345-60.
- García-Alonso S, et al. Structure of the RAF1-HSP90-CDC37 complex reveals the basis of RAF1 regulation. Mol Cell. 2022;82(18):3438-52.e8.
- Chiosis G, Digwal CS, Trepel JB, Neckers L. Structural and functional complexity of HSP90 in cellular homeostasis and disease. Nat Rev Mol Cell Biol. 2023;24(11):797-815.
- Li J, Buchner J. Structure, function, and regulation of the Hsp90 machinery. Biomed J. 2013;36(3):106-17.
- Youssef ME, et al. Role of ganetespib, an HSP90 inhibitor, in cancer therapy: from molecular mechanisms to clinical practice. Int J Mol Sci. 2023;24(5):5014.
- Solit DB, Scher HI, Rosen N. Hsp90 as a therapeutic target in prostate cancer. Semin Oncol. 2003;30(5):709-16.
- Hoter A, Rizk S, Naim HY. The multiple roles and therapeutic potential of molecular chaperones in prostate cancer. Cancers (Basel). 2019;11(8):1194.
- Moon SJ, et al. Bruceantin targets HSP90 to overcome resistance to hormone therapy in castration-resistant prostate cancer. Theranostics. 2021;11(2):958-73.
- Li J, et al. Androgen-targeted hsa_circ_0085121 encodes a novel protein and improves the development of prostate cancer through facilitating the activity of the PI3K/Akt/mTOR pathway and enhancing AR-V7 alternative splicing. Cell Death Dis. 2024;15(11):848.
- Taneja SS, et al. Toremifene: a promising therapy for the prevention of prostate cancer and complications of androgen deprivation therapy. Expert Opin Investig Drugs. 2006;15(3):293-305.
- Yang J, et al. Protective effect of Fuzi Lizhong decoction against non-alcoholic fatty liver disease via an anti-inflammatory response through regulation of p53 and PPARG signaling. Biol Pharm Bull. 2020;43(11):1626-33.
- Sui Q, et al. Ganoderic acid A: an in-depth review of pharmacological effects and molecular docking analysis. J Ethnopharmacol. 2025;349:119868.
- Zhang T, et al. PPARG is a potential target of Tanshinone IIA in prostate cancer treatment: a combination study of molecular docking and dynamic simulation based on transcriptomic bioinformatics. Eur J Med Res. 2023;28(1):487.
- Astakhova A, et al. Inhibitors of oxidative phosphorylation modulate astrocyte inflammatory responses through AMPK-dependent Ptgs2 mRNA stabilization. Cells. 2019;8(10):1185.
- Liu Y, Cai Y, He C, Chen M, Li H. Anticancer properties and pharmaceutical applications of plumbagin: a review. Am J Chin Med. 2017;45(3):423-41.
- Ahmad I, et al. Synergistic inhibition of colon cancer cell proliferation via p53, Bax, and Bcl-2 modulation by curcumin and plumbagin combination. ACS Omega. 2025;10(18):19045-60.
- Bello IJ, Oyebode OT, Olanlokun JO, Omodara TO, Olorunsogo OO. Plumbagin induces testicular damage via mitochondrial-dependent cell death. Chem Biol Interact. 2021;347:109582.
- Hafeez BB, et al. Plumbagin inhibits prostate carcinogenesis in intact and castrated PTEN knockout mice via targeting PKCε, Stat3, and epithelial-to-mesenchymal transition markers. Cancer Prev Res (Phila). 2015;8(5):375-86.
- Kumar MR, et al. Formulation of plumbagin-loaded long-circulating pegylated liposomes: in vivo evaluation in C57BL/6J mice bearing B16F1 melanoma. Drug Deliv. 2011;18(7):511-22.
- Mandala Rayabandla SK, et al. Preparation, in vitro characterization, pharmacokinetic, and pharmacodynamic evaluation of chitosan-based plumbagin microspheres in mice bearing B16F1 melanoma. Drug Deliv. 2010;17(3):103-13.
- Tiwari SB, Pai RM, Udupa N. Temperature-sensitive liposomes of plumbagin: characterization and in vivo evaluation in mice bearing melanoma B16F1. J Drug Target. 2002;10(8):585-91.
- Onoue S, Yamada S, Chan HK. Nanodrugs: pharmacokinetics and safety. Int J Nanomedicine. 2014;9:1025-37.