פרוטוקול זה מספק תהליך עבודה מעשי וניתן לשחזור לסנכרון תאים בתרבית, ביצוע דגימה במרווחי זמן מדורגים לאורך 24–72 h ללא איסוף במהלך הלילה, וניתוח ביטוי של גנים של השעון הביולוגי.
הרשמה ל-JoVE נדרשת לצפייה בתוכן זה. התחברו או התחילו בגרסת ניסיון בחינם.
מאמר שיטה
מקצבים צירקדיים בצלחת פטרי: סנכרון של תאי mHypoE-42 מההיפותלמוס של עכבר לצורך אנליזה של ביטוי גנים של השעון הצירקדי
במאמר זה
סיכום
תקציר
מקצבים צירקדיים הם תנודות אנדוגניות של כ-24 h המווסתות מגוון רחב של תהליכים תאיים ופיזיולוגיים, כולל ביטוי גנים, מטבוליזם והתנהגות. מקצבים אלו נובעים מלולאות משוב תעתוק-תרגום מקושרות המגיבות לרמזים זמניים וסביבתיים. מכיוון שהבקרה הצירקדית היא דינמית מאוד, אפילו וריאציות ניסיוניות קטנות יכולות להשפיע על הפאזה, האמפליטודה והמקצב, מה שהופך תהליכי עבודה ניסיוניים סטנדרטיים לחיוניים להשגת תוצאות מהימנות וניתנות לשחזור. מטרתו של הפרוטוקול הנוכחי היא לספק תהליך עבודה מעשי וניתן לשחזור לסנכרון של תאים בתרבית, ביצוע דגימה לאורך זמן (time-course sampling) וניתוח ביטוי של גני השעון הצירקדי בתנאי מעבדה סטנדרטיים. הפרוטוקול מתאר סנכרון מבוסס הלם סרום (serum shock), איסוף דגימות במרווחי זמן לאורך 24–72 h כדי להימנע מדגימה במהלך הלילה, מיצוי ribonucleic acid, סינתזת complementary deoxyribonucleic acid, תגובת שרשרת פולימראז כמותית בזמן אמת (quantitative real-time polymerase chain reaction), וניתוח מקצב צירקדי באמצעות גישות סטטיסטיות מתאימות. תהליך העבודה מדגיש גם שיקולים ניסיוניים קריטיים, כולל תנאי סנכרון, הערכת איכות דגימות, בחירת גני ייחוס וניתוח נתונים, כדי לשפר את השחזור בין ניסויים שונים. שיטה זו מספקת גישה נגישה לחקירת מנגנונים צירקדיים מולקולריים ולהערכת ביטוי גנים מקצבי בתאי תרבית, ובכך מקלה על מחקרים של בקרה צירקדית במודלים ניסיוניים פיזיולוגיים ובמודלים הקשורים למחלות.
מבוא
מקצבים צירקדיים הם מחזורים אנדוגניים עם מחזוריות של כ-24 h המווסתים מגוון רחב של תהליכים פיזיולוגיים, מטבוליים ותאיים1. במערכות של יונקים, מקצבים אלו מתואמים על ידי שעון מרכזי הממוקם בגרעין הסופראכיאזמטי (SCN) של ההיפותלמוס ועל ידי שעונים מולקולריים בעצמם ברמה התאית. שעונים אלו מורכבים מלולאות משוב תעתוק-תרגום השזורות זו בזו, המערבות גני שעון מרכזיים, הכוללים את החלבון circadian locomotor output cycles protein kaput (Clock), basic helix-loop-helix aryl hydrocarbon receptor nuclear translocase-like 1 (Bmal1), period (Per), ו-cryptochrome (Cry)2. בהינתן תפקידו המרכזי של השעון הצירקדי בתהליכים ביולוגיים מגוונים, מודלים תאיים in vitro הפכו לכלים חשובים לחקר המנגנונים המולקולריים של בקרה זמנית תחת תנאים ניסיוניים מבוקרים.
מטרתו של הפרוטוקול הנוכחי היא לספק תהליך עבודה אמין, מעשי וניתן לשחזור לסנכרון תאים בתרבית באמצעות פרוטוקול של הלם סרום (serum shock), ביצוע דגימות בנקודות זמן מדורגות, וניתוח ביטוי של גני השעון הביולוגי תוך הימנעות מאיסוף דגימות במהלך הלילה. על ידי שיפור ההיתכנות של דגימה צירקדית מבלי לפגוע באיכות הנתונים, תהליך עבודה זה נועד להקל על מחקרים של תהליכים ביולוגיים מחזוריים תוך שימוש בטכניקות מעבדה סטנדרטיות.
מחקרים על השעון הצירקדי בוצעו במגוון רחב של מודלים in vitro, כולל שורות תאי סרטן אנושיים3, פיברובלסטים של rat-14, תרביות של SCN 5, ואורגנואידים6. למרות שרוב התאים של יונקים הם בעלי שעונים צירקדיים תפקודיים, היעדרם של רמזי סנכרון, כגון אור, מוביל במהירות לחוסר סנכרון בתרבית, דבר המגביל את חקר המקצבים הצירקדיים in vitro7. לכן, טכניקות סנכרון הן חיוניות לחקירת מנגנוני השעון המולקולרי והשלכותיהם על הבריאות והמחלה.
פותחו מספר אסטרטגיות סנכרון עבור תאי יונקים בתרבית. סנכרון מבוסס גלוקוקורטיקואידים באמצעות dexamethasone הוא אחד הגישות הנפוצות ביותר, כיוון שהוא מאתחל בצורה חזקה את המקצבים הצירקדיים בסוגי תאים רבים תוך הפחתת חלק מהשונות הקשורה לגירוי בסרום8. באופן דומה, הפעלה של סיגנל cyclic adenosine monophosphate באמצעות forskolin שימשה בהצלחה לסנכרון שעונים פריפריים במודלים תאיים נבחרים9. גישות אחרות כוללות טיפול באותות המועברים בדם4, תרכובות כימיות שונות8,10, החלפת מצע גידול3, הלם טמפרטורה11, מחזורי חמצן12, וגירוי מכני13. יחד, שיטות אלו קידמו משמעותית את המחקר הצירקדי; עם זאת, הן עשויות לדרוש ציוד ייעודי, תנאי ניסוי ספציפיים או אופטימיזציה נוספת, מה שהופך את תיקוף אסטרטגיית הסנכרון הנבחרת לחיוני עבור כל מודל ביולוגי ויישום ניסויי14.
הלם סרום (Serum shock) הוא אחת מגישות הסנכרון הנפוצות והמקובלות ביותר, והוא מבוסס על חשיפת תאים בתרבית לגירוי קצר מועד של ריכוז סרום גבוה4. מכיוון שהגירוי הוא חולף, ההפרעה הממושכת של מסלולי האיתות התאיים ממוזערת4, מה שמפחית השפעות מטריות פוטנציאליות על ניתוחים המשכיים. כתוצאה מכך, הלם סרום מתאים במיוחד למחקרים של ביטוי גנים צירקדיים ותפקוד השעון המולקולרי. בנוסף, הפרוצדורה פשוטה ליישום ואינה דורשת ציוד מיוחד, מה שהופך אותה לנגישה וניתנת לשחזור בקלות בין מעבדות שונות. עם זאת, מגבלה מעשית של ניסויי הלם סרום היא לוח הזמנים האינטנסיבי של הדגימה הנדרש כדי לאפיין את המקצב הצירקדי באופן מדויק. ניתוח מקצבים מהימן דורש בדרך כלל איסוף דגימות במרווחי זמן קבועים, לרוב כל 2–6 h לאורך מחזור צירקדי אחד או יותר (24–72 h)14, מה שמצריך לעיתים קרובות איסוף דגימות במהלך הלילה.
זרימת העבודה המתוארת כאן נותנת מענה לאתגר הלוגיסטי הזה על ידי פריסה מדורגת של תחילת הסנכרון בין מספר פלטות תרבית, ובכך מאפשרת דגימה צירקדית מלאה במהלך שעות העבודה הרגילות תוך הימנעות מאיסוף דגימות במהלך הלילה. במקום להציג אסטרטגיית סנכרון חדשה, פרוטוקול זה מספק יישום מפורט וניתן לשחזור של שיטת הלם סרום מבוססת, בשילוב עם לוח זמנים מעשי לדגימה וניתוח ביטוי גנים המשכי. זרימת עבודה זו מתאימה במיוחד למחקרים של ביטוי גנים צירקדי בתאים בתרבית תוך שימוש בטכניקות מעבדה נפוצות. בעת התאמת הפרוטוקול למודלים תאיים נוספים, יש לאפטמיזציה ולתקף את הפרמטרים הניסיוניים, כולל צפיפות התאים, תנאי הסנכרון, מרווחי הדגימה ובחירת הגן הייחוס, עבור סוג התא הספציפי לפני היישום.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
פרוטוקול
הפרוטוקול הבא מתאר שיטה מאומתת לסנכרון של שורת תאי ההיפותלמוס העובריים של עכבר mHypoE-42. יש לאמת ולבצע אופטימיזציה של פרוטוקול הסנכרון באופן עצמאי לפני יישומו על סוגי תאים מתורבתים אחרים. ראה איור 1 לסקירה כללית של זרימת העבודה ו- איור משלים 1 עבור לוח הזמנים השבועי של הדגימה. עיין ב- טבלת חומרים עבור כל הרכיבים, הציוד והמכשירים המשמשים בפרוטוקול זה. יש לבצע את כל הליכי תרביות התאים בקבינה לבטיחות ביולוגית (biosafety cabinet) מאושרת, תוך שימוש ברכיבים ובציוד סטריליים.
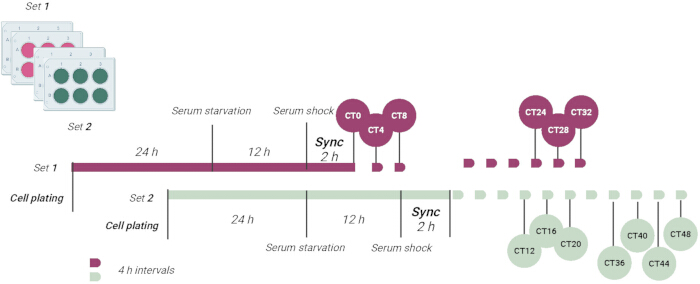
איור 1. סקירה סכמטית של פרוטוקול סנכרון הלם סרום מדורג. סכמה הממחישה את זרימת העבודה המשמשת לסנכרון תאי mHypoE-42 באמצעות הלם סרום בשתי קבוצות ניסוייות מדורגות. התכנון המדורג מאפשר איסוף דגימות צירקדיות במהלך שעות עבודה רגילות תוך הימנעות מדגימה במהלך הלילה. הדגימות מעובדות לאחר מכן להפקת RNA, תגובת שרשרת פולימראז כמותית בזמן אמת (qRT-PCR) וניתוח מקצבים צירקדיים. נוצר באמצעות Biorender.com. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
1. תרבית תאים
- תרבתו תאי mHypoE-42 נצמדים בתווך Dulbecco’s Modified Eagle Medium (DMEM), גלוקוז גבוה (4500 mg/L), בתוספת 10% (v/v) סרום עגל עוברי (FBS) שעבר אינאקטיבציה בחום, 3.7 g/L נתרן ביקרבונט, ו-1% תמיסת אנטיביוטיקה.
- שמרו את התאים בטמפרטורה של 37°C באינקובטור לח הכולל 95% אוויר ו-5% פחמן דו-חמצני (CO2) בבקבוקי תרבית T75 עם נפח תרבית סופי של 10 mL.
הערה: בדקו כל מנה חדשה של FBS לפני תחילת הניסויים, מכיוון שמנות סרום עשויות להשתנות. - בצעו תת-תרבית לתאים כאשר הם מגיעים לכ-80%–90% התלכדות (confluence). שטפו את התאים ב-1× phosphate-buffered saline (PBS; pH 7.4) סטרילי, הוסיפו 3 mL של תמיסת טריפסין 0.5%, והדגירו למשך 3–5 דקות כדי לנתק את התאים.
- הוסיפו לפחות פי שניים מנפח הטריפסין של תווך תרבית מלא המכיל 10% (v/v) FBS כדי לנטרל את הטריפסין.
- דללו את התאים בתווך גידול טרי ביחס של עד 1:2.
הערה: הימנעו משימוש בתאים שעברו מעברים מרובים מדי (למשל, מעברים מעל 40 עבור תאי mHypoE-42). חממו מראש את כל התמיסות לפני השימוש. בדקו באופן קבוע את התרביות לזיהום במיקופלסמה. - המשיכו לביצוע בדיקות סנכרון 24 שעות לאחר זריעת התאים בריכוז של 2.0 × 10⁵ תאים לבאר, כפי שמתואר בשלב 2. שמרו על תרביות תאים שגרתיות ברמת התלכדות של כ-80%–90% לפני ביצוע מעבר.
2. סנכרון של שורת התאים mHypoE-42
- הכנת תאים
- לאחר טריפסינציה (trypsinization), סבב את התאים בצנטריפוגה ב- 700 × g למשך 5 דקות.
- שפוך את הנוזל העליון (supernatant) ותלה את משקע התאים (cell pellet) מחדש ב-10 mL של מצע גידול טרי.
- ערבב את תרחיף התאים עם צבע trypan blue ביחס של 1:1 (נפח כולל של 20 μL) וקבע את ריכוז התאים באמצעות המוציטומטר (hemocytometer).
הערה: השלם את פינוי התמיסות המכילות trypan blue בהתאם להנחיות המוסדיות לפינוי פסולת כימית. אין לשפוך צבע שלא נעשה בו שימוש לכיור.
- זריעת תאים ותכנון ניסויי מדורג
- זריע 2.0 × 10⁵ תאים לכל באר בפלטות של 6 בארות או בצלחות גידול של 35-mm. דגור את התרביות ב-37°C למשך 24 שעות.
הערה: התחל בסנכרון סרום 24 שעות לאחר זריעת התאים. לפיכך, אין צורך בהגעה למצב מוגדר מראש של התלכדות תאים (confluence) לפני הסנכרון. במקום זאת, בחן את התרביות תחת מיקרוסקופ כדי לוודא שהתאים נצמדו באופן מלא ומראים מורפולוגיה תקינה לפני תחילת הליך הסנכרון. - חלק את פלטות הגידול באופן אקראי לשתי קבוצות ניסוייות. השתמש בקבוצה הראשונה כדי לייצר נקודות זמן צירקדיות (CT) של CT0, CT4, CT8, CT24, CT28 ו-CT32. השתמש בקבוצה השנייה כדי לייצר CT12, CT16, CT20, CT36, CT40, CT44 ו-CT48 (איור 1; איור משלים 1).
- הגדל את מספר הבארים או הפלטות לפי הצורך כדי לכלול חזרות טכניות.
הערה: צמצם את השונות על ידי הכנת כל הפלטות מאותו תרחיף תאים, שמירה על צפיפות זריעה ותנאי גידול זהים, וביצוע הסנכרון באמצעות אותם ריאגנטים והגדרות ניסוייות. התאם את פורמט כלי הגידול וצפיפות הזריעה לפי הצורך עבור סוגי תאים אחרים. בעת שימוש בפלטות של 6 בארות, שלב נקודות CT שנאספות בו-זמנית כדי למקסם את ניצול הפלטה.
- זריע 2.0 × 10⁵ תאים לכל באר בפלטות של 6 בארות או בצלחות גידול של 35-mm. דגור את התרביות ב-37°C למשך 24 שעות.
- סנכרון
- לאחר 24 שעות, שאב את המצע מהקבוצה הראשונה של הפלטות והוסף 1 mL של DMEM נטול סרום. דגור למשך 12 שעות כדי להשרות הרעבת סרום.
- הכן תמיסת סרום סוס בריכוז 50% (v/v) ב-DMEM עם רמות גלוקוז גבוהות מיד לפני השימוש.
- שאב את מצע ההרעבה מהקבוצה הראשונה וחשף את התאים ל-1 mL של תמיסת סרום סוס 50% שהוכנה טרי למשך שעתיים.
- במקביל, שאב את המצע מהקבוצה השנייה של הפלטות והחלף אותו ב-1 mL של DMEM נטול סרום. דגור למשך 12 שעות.
- לאחר הלם הסרום של השעתיים, שאב את המצע והוסף 1 mL של DMEM עם רמות גלוקוז גבוהות המועשר ב-10% (v/v) FBS שעבר אינאקטיבציה תרמית. הגדר נקודת זמן זו כ-CT0.
- איסוף דגימות
- הנח את פלטות הגידול על קרח. שאב את המצע, שטוף את התאים פעמיים עם 1 mL של 1× PBS סטרילי קר, שפוך את תמיסת השטיפה, ולחץ את התאים באופן מכני באמצעות עד 1 mL של ריאגנט ליזיס.
אזהרה: ריאגנט הליזיס מכיל כימיקלים מסוכנים. בצע את כל שלבי הטיפול במנדף כימי מאושר תוך לבישת ציוד מגן אישי מתאים. פנה את הפסולת בהתאם להנחיות הבטיחות הכימיות המוסדיות. - העבר כל ליזאט למבחנה סטרילית ואחסן את הדגימות ב-−80°C עד למיצוי ה-RNA.
- חזור על שלבים 2.4.1 ו-2.4.2 כדי לאסוף דגימות ב-CT4 וב-CT8.
- ב-CT8, חזור על שלב 2.3.2 עבור הקבוצה הניסויית השנייה כדי לסנכרן את שאר התאים.
- לאחר שעתיים של הלם סרום, סיים את הסנכרון של הקבוצה הניסויית השנייה על ידי החלפת המצע ב-1 mL של DMEM עם רמות גלוקוז גבוהות המועשר ב-10% (v/v) FBS שעבר אינאקטיבציה תרמית.
- אסוף דגימות לסירוגין משתי הקבוצות הניסוייות כדי להשיג CT12, CT24, CT16, CT28, CT20 ו-CT32. למחרת, חזור על הליך האיסוף כדי להשיג CT36, CT40, CT44 ו-CT48.
הערה: הרעבת סרום וסנכרון הוחלו בהתאם ללוח הזמנים הניסויי לאחר זריעת התאים ולא לפי התלכדות תאים מוגדרת מראש. ודא שהתאים נצמדו באופן מלא ומראים מורפולוגיה תקינה לפני תחילת הסנכרון. למרות שנקודות CT עוקבות נבדלות ב-4 שעות, האיסופים אינם מבוצעים במרווחים של 4 שעות. עיין באיור משלים 1 ללוח הזמנים השבועי המלא של האיסופים.
- הנח את פלטות הגידול על קרח. שאב את המצע, שטוף את התאים פעמיים עם 1 mL של 1× PBS סטרילי קר, שפוך את תמיסת השטיפה, ולחץ את התאים באופן מכני באמצעות עד 1 mL של ריאגנט ליזיס.
3. עיבוד דגימות: מיצוי RNA
הערה: הפרוטוקולים עשויים להשתנות בהתאם להקשר הניסויי וליישום. סבב העבודה הבא מתאר דוגמה להליך יעיל להפקת RNA, סינתזת DNA משלים (cDNA), ותגובת שרשרת פולימראז כמותית בזמן אמת (qRT-PCR). הפק תערובת RNA כולל באמצעות שיטת ליזיס המבוססת על פנול והפרדת פאזות, ולאחריה טיהור באמצעות עמודי ספין של סיליקה.
- הכנת דגימות והפרדת פאזות
- הפשיר את הדגימות, בצע הומוגניזציה חוזרת לליזאטים והדגס אותם בטמפרטורת החדר למשך 5 min.
- הוסף 200 μL של כלורופורם לכל 1 mL של ריאגנט ליזה.
אזהרה: כלורופורם הוא חומר נדיף ורעיל. בצע את כל הפרוצדורות הכוללות כלורופורם בתוך מנדף כימי מאושר תוך לבישת ציוד מגן אישי מתאים. - נער את המבחנות בעוצמה למשך 15 s והדגס אותן בטמפרטורת החדר למשך 3 min.
- סבב את הדגימות בצנטריפוגה ב- 12,000 × g למשך 15 min ב-4°C. אפשר לדגימות להיפרד לשלוש פאזות: פאזה תחתונה של פנול-כלורופורם המכילה חלבונים, פאזה בינונית (interphase) לבנה המכילה DNA, ופאזה מימית עליונה המועשרת ב-RNA.
- העבר בזהירות את הפאזה המימית למבחנה סטרילית חדשה ללא הפרעה לפאזה הבינונית. אחסן את הפאזה האורגנית ב-4°C אם מתוכנן בידוד של חלבונים או DNA בהמשך.
הערה: בצע בידוד חלבונים או DNA בהתאם לפרוטוקול המתאים אם בכוונתך להפיק ביו-מולקולות אלו מהפאזה האורגנית.
- טיהור RNA
- הוסף נפח שווה של אתנול 70% (שהוכן עם מים נקיים מ-RNase) לפאזה המימית ובצע וורטקס פעמיים למשך 15 s כדי לעודד קישור של ה-RNA.
- העמס את הדגימה על עמודת סיליקה (silica spin column) וטהר את ה-RNA בהתאם לזרימת העבודה של טיהור בעמודה.
- עשה עיכול ל-DNA גנומי מזוהם באמצעות DNase למשך 15 min בטמפרטורת החדר.
- שטוף את העמודה באמצעות תמיסות השטיפה המסופקות.
- בצע שטיפה נוספת עם 100 μL של תמיסת שטיפה וסבב בצנטריפוגה ב-11,000 × g למשך 2 min כדי לייבש את ממברנת הסיליקה.
- העבר את עמודת הסיליקה למבחנת מיקרו-צנטריפוגה נקייה. בצע אלוציה ל-RNA עם 40–60 μL של מים נקיים מ-RNase על ידי הנחת המים ישירות על מרכז ממברנת הסיליקה וסבב בצנטריפוגה ב-11,000 × g למשך 1 min.
הערה: בחר את נפח האלוציה בהתאם לתנובת ה-RNA ולריכוז הרצויים. נפח אלוציה של 60 μL מספק בדרך כלל השבה מלאה יותר של ה-RNA מממברנת הסיליקה אך מפיק תמיסת RNA מדוללת יותר. לעומת זאת, נפח אלוציה של 40 μL מפיק תכשיר RNA מרוכז יותר אך עשוי להפחית את השבת ה-RNA הכוללת. בצע אופטימיזציה לנפח האלוציה בהתאם להמלצות היצרן ולדרישות של היישום הבא בתהליך.
- הערכת איכות ה-RNA
- הנח את דגימות ה-RNA על קרח והעבר 5 μL מכל דגימה למבחנת מיקרו-צנטריפוגה סטרילית חדשה לצורך הערכת איכות.
- הערך את שלמות ה-RNA באמצעות אלקטרופורזה על ג'ל אגרוז 1.5% או אלקטרופורזה קפילרית. ודא את נוכחותן של רצועות RNA ריבּוזומליות מובחנות של 28S ו-18S.
- קבע את ריכוז וטוהר ה-RNA על ידי מדידת בליעה באמצעות ספקטרופוטומטר.
הערה: השלם את סילוק הפסולת המכילה פנול בהתאם להנחיות המוסדיות לסילוק פסולת כימית. אין להשליך פסולת כימית מסוכנת לכיור. עבור דגימות של תאים בתרבית, ריכוזי RNA נעים בדרך כלל בין 200 ל-1000 ng/μL והם מתאימים לסנתזת cDNA ו-qRT-PCR. קבל דגימות RNA עם יחס A260/230 בין 2.0 ל-2.2 ויחס A260/280 של כ-2.0 (ראה טבלה משלימה 1).
- אחסון RNA
- אחסן דגימות RNA מטוהרות ב- −80°C עד לסנתזת ה-cDNA.
4. עיבוד דגימות: סינתזת cDNA
הערה: סנתז cDNA מ-1 μg של RNA כולל באמצעות ערכה לסנתז cDNA של הגדיל הראשון. התאם את נפחי התגובה ותנאי האינקובציה בהתאם להוראות היצרן.
- שעתוק הפוך
- המיסו את דגימות ה-RNA על קרח. הכינו תגובת שעתוק הפוך בנפח 20 μL המכילה 1 μg של RNA כולל, 10 μL של 2× Master Mix (המכיל מעכב ריבונוקליאז, הקסמרים אקראיים, פריימרים של oligo(deoxythymidine), יוני מגנזיום [Mg2+], ודאוקסינוקלאוטיד טריפוספט), 2 μL של תערובת אנזימים (המכילה reverse transcriptase), ומים שעברו טיפול ב-diethyl pyrocarbonate עד לנפח סופי של 20 μL.
- דגרו את התגובה בטרמיקלר (thermal cycler) למשך 10 דקות ב-25°C להיברוג של הפריימרים, ולאחר מכן למשך 30 דקות ב-50°C עבור סינתזת ה-cDNA. נטרלו את ה-reverse transcriptase על ידי דגירה של התגובה ב-85°C למשך 5 דקות.
- הוסיפו 1 μL של RNase H ודגרו את התגובה למשך 20 דקות ב-37°C כדי לפרק את גדיל ה-RNA של ההיבריד RNA–DNA.
- דללו את תכשיר ה-cDNA ביחס של עד 1:20 עם מים סטריליים, בהתאם לדרישות אופטימיזציית הבדיקה, ואחסנו את ה-cDNA המדולל ב-−20°C עד לביצוע אנליזת תגובת שרשרת פולימראז כמותית בזמן אמת (qRT-PCR).
5. עיבוד דגימות: תגובת שרשרת פולימראז כמותית בזמן אמת (qRT-PCR)
הערה: יש למדוד את הביטוי של גנים של השעון הצירקדי באמצעות qRT-PCR. ניתן לעיין בטבלה משלימה 2 עבור רצפי פריימרים מאושרים, טמפרטורות היברידציה (annealing) וריכוזי פריימרים.
- אופטימיזציה של הבדיקה
- יש לתקף ולאפטם את ריכוז הפריימרים, טמפרטורת ההיbride (annealing) וכמות ה-cDNA המוכנסה באמצעות דגימות cDNA מאוחדות (pooled) ועקומת סטנדרט לפני ניתוח הדגימות הניסיוניות. בצעו את אופטימיזציית ותיקוף הבדיקה כפי שתואר בעבר15,16.
- הגדרת התגובה
- הכינו כל תגובת qRT-PCR בנפח של 10 μL על ידי ערבוב של 5 μL של 2× master mix, כ-0.4 μL מכל אחד מהפריימרים הקדמי (forward) וההפוך (reverse), 0.2 μL של מים שעובדו ב-diethyl pyrocarbonate, ו-4 μL של תבנית cDNA בתוך פלטת PCR בעלת 96 בארות.
- אטמו את הפלטה באמצעות סרט איטום שקוף אופטית או מדבקת איטום. סובבו את הפלטה בצנטריפוגה ב-700 × g למשך עד 5 דקות ב-4°C כדי להסיר בועות ולרכז את תערובת התגובה בתחתית כל בארה.
- נתחו את כל דגימות ה-cDNA כדי לקבוע את הביטוי של הגנים המטרה Bmal1 ו-Per2.
- נתחו את הגן הפחסי שנבחר (B2m) תוך שימוש באותה דילול של cDNA כדי לנרמל את ביטוי הגנים בין הדגימות.
- מעגלי תרמיים
- בצעו qRT-PCR תחת תנאי המעגלים הבאים: דנטורציה ראשונית והפעלה של ה-DNA polymerase מסוג hot-start ב-95°C למשך 2 דקות, ולאחריהם 39 מחזורים של 95°C למשך 5 s ו-60°C למשך 30 s.
- בצעו ניתוח עקומת המסה (melt curve) על ידי חימום התגובות ל-95°C למשך 5 s, ולאחריו עליות הדרגתיות של 0.5°C עד ל-95°C, עם השהיה של 5 s בכל עלייה.
הערה: התאימו את זמני ההשהיה והגדרות עקומת המסה לפי המלצות ה-master mix במידת הצורך.
- תיקוף הגן הפחסי
הערה: בניסויים של סנכרון סרום, העריכו גנים פחסיים מועמדים מכיוון שטיפול בסרום עלול לשנות את הביטוי של גנים פחסיים (housekeeping genes)17. העריכו את יציבות הביטוי באמצעות שיטות כגון BestKeeper18, geNorm19, NormFinder20, או שיטת ΔCt ההשוואתית21. בחרו את הגן או הגנים היציבים ביותר לצורך נורמליזציה. במחקר זה, β-actin (Actb) ו-β-2-microglobulin (B2m) הוערכו באמצעות תוכנת RefFinder22, המשלבת מספר אלגוריתמים לתיקוף גנים פחסיים. B2m הראה את יציבות הביטוי הגבוהה ביותר לאורך מהלך הזמן הצירקדי ולכן נבחר לנורמליזציה. - אימות המוצר
- אמתו את ספציפיות ההגברה על ידי ניתוח תוצרי ה-PCR באמצעות אלקטרופורזה של ג'ל אגרוז 2%.
הערה: קבעו את טמפרטורת ההיbride האופטימלית על ידי בדיקת מספר טמפרטורות (למשל, 58 °C, 60°C, ו-62°C). בחרו בטמפרטורה המניבה את ערך מחזור הכימות (Cq) הנמוך ביותר תוך שמירה על שיא יחיד בעקומת המסה ללא עדות ליצירת דימרים של פריימרים.
הערה: קבלו בדיקות עם יעילויות הגברה שבין 90% ל-110% ומקדם דטרמינציה (R2) של 0.99 ומעלה. ודאו שטמפרטורות המסה אינן נבדלות ביותר מ-0.5°C בין חזרות טכניות. קבלו לניתוח רק חזרות טכניות עם הפרש Cq של ≤0.5 והשתמשו בערכים אלו לחישוב רמות הביטוי הממוצעות. בצעו את כל התגובות בחזרות טכניות (למשל, שלשות) וכללו הן בקרה ללא תבנית (non-template control) והן בקרה ללא שעתוק הפוך (no-reverse-transcription control).
- אמתו את ספציפיות ההגברה על ידי ניתוח תוצרי ה-PCR באמצעות אלקטרופורזה של ג'ל אגרוז 2%.
6. ניתוח נתונים
- ניתוח ביטוי גנים
- חשב את הממוצע של החזרות הטכניות עבור כל דגימה לפני ניתוחים המשכיים.
- חשב את ערך ה-ΔCq עבור כל דגימה ונקודת זמן באמצעות המשוואה הבאה:
ΔCq = Cqtarget gene - Cqhousekeeping gene - חשב את ערך ה-ΔΔCq עבור כל דגימה ונקודת זמן באמצעות המשוואה הבאה:
ΔΔCq = ΔCqsample - ΔCqcontrol
הערה: לצורך חישוב ה-ΔΔCq, ערך ה-ΔCqcontrol הוגדר כממוצע ערכי ה-ΔCq שהתקבלו מממוצע של כל דגימות הביקורת בכל ה-CTs. - הערך את הפרמטרים הצירקדיים, כולל ה-midline estimating statistic of rhythm (MESOR), אמפליטודה, שיא (peak) ומופע (phase), באמצעות CircaCompare23. בצע את הניתוח באמצעות האפליקציה המקוונת או באמצעות מימוש חבילת ה-R.
- ניתוח CircaCompare מקוון
הערה: המימוש המקוון מדווח על אומדני פרמטרים צירקדיים מלאים רק כאשר מערך הנתונים עומד בקריטריונים הסטטיסטיים למקצביות (rhythmicity). כאשר המקצביות חלשה או אינה מובהקת סטטיסטית, השתמש במימוש ה-R כדי לקבל אומדני פרמטרים עבור כל מערכי הנתונים.- הכן קובץ ערכים מופרדים בפסיקים (.csv).
- הזן את משתנה הזמן (מספרי; שעות) בעמודה 1.
- הזן את משתנה הקיבוץ (שתי קבוצות ניסוייות בלבד) בעמודה 2.
- הזן את משתנה התוצאה (מספרי; ΔΔCq) בעמודה 3.
- העלה את קובץ ה-.csv לאפליקציית CircaCompare המקוונת.
- שייך את משתני הזמן, הקבוצה והתוצאה לעמודות המתאימות.
- בחר ב-Run כדי לבצע את הניתוח.
- הכן קובץ ערכים מופרדים בפסיקים (.csv).
- ניתוח CircaCompare ב-R
- בצע את הניתוח באמצעות R גרסה 4.5.1 וחבילת CircaCompare גרסה 0.2.024.
- התקן את חבילות ה-R הנדרשות.
- התקן את חבילת devtools (גרסה 2.5.2).
- התקן את חבילת circacompare (גרסה 0.2.0).
- התקן את חבילת ggplot2 (גרסה 4.0.3).
- התקן את חבילת svglite (גרסה 2.2.2).
- העלה את קובץ ה-csv של נתוני הקלט.
- הפעל את ניתוח ה-CircaCompare לאחר הגדרת alpha_threshold = 1.
הערה: הגדרת alpha_threshold = 1 מדווחת על אומדני פרמטרים צירקדיים עבור כל התנודות המותאמות ללא קשר למובהקות הסטטיסטית. עם זאת, רק תנודות עם p-value < 0.05 צריכות להתפרש כמקצביות ומובהקות סטטיסטית. - התאם אישית את Supplementary File 1 לפני הרצת הסקריפט.
- החלף את “XXX.csv” בשם קובץ נתוני הקלט.
- החלף את “YYY.csv” בשם קובץ התוצאות הרצוי.
- החלף את “ZZZ.svg” בשם קובץ הגרף הרצוי.
- כוונן את גבולות ציר ה-y (ylim) וכל פרמטר שרטוט נוסף בהתאם למערך הנתונים.
- עיין ב-Supplementary Table 3 לדוגמה לקובץ קלט.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
תוצאות
סנכרון מוצלח מעיד על מקצב צירקדי בעל מובהקות סטטיסטית של הגנים שעתיים שנבדקו בתנאי הבקרה (p < 0.05). במחקר זה בוצעו שלושה ניסויים ביולוגיים בלתי תלויים, כאשר 0.1% dimethyl sulfoxide שימש כבקרה שלילית. Bmal1 ו-Per2 נבחרו כסממנים צירקדיים מייצגים מכיוון שהם מרכיבי ליבה של השעון הצירקדי המולקולרי ומראים דפוס ביטוי אנטי-פאזי מאופיין היטב. פרופילי ביטוי מקצביים מייצגים שהתקבלו לאחר הסנכרון מוצגים ב-איור 2. הפרמטרים הצירקדיים התואמים, כולל מקצב, MESOR, אמפליטודה וזמן ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
דיון
מקצבים צירקדיים הם מחזורים אנדוגניים של כ-24 h המווסתים מגוון רחב של תהליכים פיזיולוגיים, מטבוליים ותאיים באמצעות מנגנוני שעון מולקולרי שמורים1,2. מודלים של סנכרון In vitro מספקים סביבה ניסויית מבוקרת לחקר מנגנונים אלה, והפכו לכלים בעלי ערך ללימוד רגולציה צירקדית בתנאים נורמליים ופתולוגיים, כולל חשיפה למזהמים סביבתיים והפרעות ניסיוניות אחרות25. הפרוטוקול המוצג כאן מתאר זרימת עבודה מעשית לסנכרון תאים בתרבית באמצעות הלם סרום (serum ...
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
גילויים
המחברים מצהירים כי אין ניגודי עניינים.
תודות
עבודה זו מומנה במשותף על ידי קרן ההתאוששות והחוסן של האיחוד האירופי (EU) ועל ידי קרנות לאומיות פורטוגליות באמצעות FCT – Fundação para a Ciência e a Tecnologia במסגרת הפרויקטים LA/P/0058/2020 (DOI: 10.54499/LA/P/0058/2020), UID/04539/2025, UID/PRR/04539/2025 (DOI: 10.54499/UID/PRR/04539/2025), ו-UID/PRR2/04539/2025 (DOI: 10.54499/UID/PRR2/04539/2025); על ידי קרן הפיתוח האזורית האירופית (ERDF) באמצעות התוכנית התפעולית האזורית Centro 2030 במסגרת פרויקט CENTRO2030-FEDER-02360200; ועל ידי קרנות לאומיות פורטוגליות באמצעות FCT תחת המענקים 2023.17896.ICDT (DOI: 10.54499/2023.17896.ICDT), 2023.12355.PEX (DOI: 10.54499/2023.12355.PEX), 2021.02220.CEECIND/CP1656/CT0008 (DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008), 2020.04850.BD (DOI: 10.54499/2020.04850.BD), ו-2021.05334.BD (DOI: 10.54499/2021.05334.BD).
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| פלטת תרבית תאים בעלת 6 בארות | Nest Biotechnology | 15140122 | פלטת תרבית תאים |
| אגרוז | NZYtech | MB02702 | הערכת איכות RNA |
| תערובת אנטיביוטיקה (פניצילין/סטרפטומייצין) | Gibco, Thermo Fisher Scientific | D5648 | תוסף לתרבית תאים |
| ערכה לסנתזת cDNA (גדיל ראשון) | NZYtech | MB12502 | שעתוק הפוך |
| כלורופורם | Sigma-Aldrich | A5256701 | ריאגנט להפרדה פאזית |
| DMEM, גלוקוז גבוה (4500 מג/ל גלוקוז, L-glutamine) | Sigma-Aldrich | 26050088 | תווך לתרבית תאים |
| מבחנות מיקרוצנטריפוגה של Eppendorf | Eppendorf | 30120086 | אחסון דגימות |
| אתנול (96%) | Fisher Bioreagents | 15552393 | טיהור RNA |
| סרום עגל עוברי, שעבר נטרול חום | Gibco, Thermo Fisher Scientific | J62692.K7 | תוסף לתרבית תאים |
| פלטת PCR בעלת 96 בארות ודפנות קשיחות | Bio-Rad Laboratories | HSP9601 | פלטת qRT-PCR |
| סרום סוס, שעבר אינאקטיבציה תרמית | Gibco, Thermo Fisher Scientific | 15400054 | סנכרון באמצעות הלם סרום |
| קו תאים mHypoE-42 (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | קו תאי היפותלמוס מעוברים של עכבר |
| פריימרים של אוליגונוקלאוטיד | NZYtech | MB12501 | פריימרים ל-qRT-PCR |
| מלח פוספט רסן (PBS) | Thermo Fisher Scientific | MB18502 | שטיפת תאים |
| תערובת מאסטר ירוקה ל-qPCR (2×) | NZYtech | MB22403 | ריאגנט ל-qRT-PCR |
| מערכת גילוי באמצעות PCR בזמן אמת | Bio-Rad Laboratories | EP0030108116 | מכשיר qRT-PCR |
| ערכה לבידוד RNA | NZYtech | 288306 | טיהור באמצעות עמודת ספין של סיליקה |
| ריאגנט לליזיס של RNA | NZYtech | MB18502 | ריאגנט למיצוי RNA מבוסס פנול |
| נתרן ביקרבונט | Sigma-Aldrich | MB22401 | תוסף למצע תרבית תאים |
| צלחית תרבית סטרילית בקוטר 35 מ"מ | Thermo Fisher Scientific | 121V | צלוחית לתרבית תאים |
| מעגל תרמי T100 | Bio-Rad Laboratories | 1861096 | סינתזת cDNA |
| בקבוק לתרבית רקמה T75 | Corning | 430641U | כלי לתרבית תאים |
| תמיסת Trypan blue (0.4%) | Gibco, Thermo Fisher Scientific | 15250061 | ספירת תאים |
| Trypsin-EDTA (0.5%) | Gibco, Thermo Fisher Scientific | 15400054 | פירוק תאיים |
מקורות
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
הגישה מוגבלת. התחברו או התחילו תקופת ניסיון כדי לצפות בתוכן זה.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב