מחקר זה בוחן את ההשפעות הטיפוליות של פורמולת Bushen-Jianpi-Qingchang ותתי-הפורמולות שלה על קוליטיס בחולדות, וחושף את מנגנוני הוויסות שלהן המכוונים לציר מטבולי של מיקרוביוטת המעי וחומצות מרה באמצעות אנליזת מולטי-אומיקה.
מאמר מחקר
נוסחת Bushen Jianpi Qingchang משפרת קוליטיס בחולדות על ידי ויסות מטבוליזם של חומצות מרה ומיקרוביוטת המעי
במאמר זה
סיכום
תקציר
הרפואה הסינית המסורתית (TCM) נמצאת בשימוש נרחב לניהול קוליטיס כיבית (UC) בשל יעילותה המוכחת ופרופיל הבטיחות המבטיח שלה. הפתוגנזה המרכזית של UC כרונית עמידה כוללת חסר בטחול ובכליות הנלווה להצטברות של לחות-חום במעיים, ומרשם ה-Bushen-Jianpi-Qingchang (BJQF) הוא מרשם תרכובתי המוכח קלינית למצב זה. מחקר זה נועד לבחון את ההשפעות הטיפוליות של BJQF ושלוש תתי-הנוסחאות המופרדות ממנו (נוסחת Bushen, BSF; נוסחת Jianpi, JPF; נוסחת Qingchang, QCF) על קוליטיס בהסבב של דקסטראן סולפט נתרן (DSS) בחולדות, ולאפיין את השפעותיהם הרגולטוריות על פרופילי חומצות מרה (BA) בעויתים ועל קהילות המיקרוביוטה במעיים. הרכב החיידקים בעויתים וריכוזי BA בחולדות עם UC המושרה על ידי DSS נמדדו באמצעות רצף גני 16S rRNA וכרומטוגרפיה נוזלית עם ספקטרומטריית מסות טנדם (LC-MS/MS), ונבחן הקשר הפוטנציאלי בין מיקרוביוטת המעיים למטבוליזם של BA. BJQF שיפר באופן משמעותי את הדלקת והכיבובים במעי הגס במודל ה-UC. זוהו שינויים מובחנים במגוון ובהרכב החיידקים בין חולדות עם קוליטיס לבין ביקורות בריאות. הקשר בין החיידקים השונים ל-BAs התמקד ב-23-deoxycholic acid (23-DCA) כצומת מטבולי מרכזי. באופן בולט, taurolithocholic acid-3-sulfate (TLCA-3S) ו-lithocholic acid-3-sulfate (LCA-3S) עשויים לשמש כסממנים ביולוגיים פוטנציאליים ליעילות. תת-הנוסחה JPF הפגינה יעילות הדומה ביותר ל-BJQF המלא. מתן של BJQF והנוסחאות המופרדות ממנו משפר ביעילות נזק היסטופתולוגי, דלקת, דיסביוזיס של מיקרוביוטת המעיים והפרעה במטבוליזם של BA בחולדות עם UC, ובכך מספק בסיס מכניסטי לטיפול תרכובתי של TCM.
מבוא
קוליטיס כיבית (UC), צורה מרכזית של מחלה דלקתית של המעי (IBD), מאופיינת בדלקת כרונית, רציפה ולא ספציפית המוגבלת לרירית המעי הגס והחלחולת. חולים עם UC סובלים מתסמינים קליניים הכוללים שלשולים, כאבי בטן, ירידה לא מכוונת במשקל וצואה דמית או מוגלתית, הפוגעות קשות באיכות החיים. הפתוגנזה של UC כוללת גורמים סביבתיים, גנטיים, מיקרוביאליים וחיסוניים. UC מתפתחת בדרך כלל בעקבות חוסר איזון במיקרוביוטת המעי, ודיסביוזה זו עלולה להאיץ באופן משמעותי את התקדמות ה-UC1. ראיות מצטברות זיהו את ציר המטבוליזם של מיקרוביוטת המעי וחומצות המרה (BA) כמודול רגולטורי מרכזי בפתוגנזה של UC. הפרעה במטבוליזם של חומצות המרה היא סימן היכר מוכר של נזק לרירית המעי ב-IBD. חומצות מרה משניות מיוצרות באופן ביולוגי אך ורק מחומצות מרה ראשוניות של המאכסון על ידי מיקרוביוטת המעי, המבטאת אנזימי מפתח כגון 7α-dehydroxylase לצורך ביותרספורמציה זו. לפיכך, מאגר חומצות המרה בצואה משמש כמדד תפקודי אידיאלי המשקף את עיצוב המיקרוביום מחדש המושרה על ידי טיפול ב-TCM.
חומצות מרה (BAs) משניות אלו פועלות כמולקולות איתות קריטיות לשמירה על הומאוסטזיס חיסוני במעי, על שלמות מחסום הרירית ועל הישרדות תאי אפיתל2. חריגות בציר זה, לרבות מחסור ב-BA משניות המושרה על ידי דיסביוזיס מיקרוביאלי ושיבוש באיתות של BA, מעוררות ישירות תגובות פרו-דלקתיות במעי וליקויים בתפקוד המחסום, מה שהופך אותו למטרה טיפולית מבטיחה להתערבות ב-UC. מיקרוביוטת המעי ממלאת תפקיד קריטי בהתפתחות UC ומשפיעה על המארח באמצעות תוצרי מטבוליזם, כגון חומצות מרה הנוצרות בתגובות התססה. שינויים חריגים במיקרוביוטת המעי ובמטבוליזם של BA קשורים באופן הדוק ל-UC3. מכיוון שמיקרוביוטת המעי מתווכת את ייצור ה-BA המשניות, שינויים בהרכב ובשפע המיקרוביאלי עלולים לשבש את מטבוליזם ה-BA ולתרום להתפתחות IBD4.
הרפואה הסינית המסורתית (TCM) אומצה באופן נרחב לניהול UC בשל יעילותה ובטיחותה בטיפול ארוך טווח, כחלופה או כתוסף לסוכנים נוגדי דלקת או מדכאי חיסון5. חימום וחיזוק של הטחול והכליות, ניקוי המעי וסילוק לחות הם עקרונות טיפוליים מרכזיים עבור UC6. על פי תיאוריית ה-TCM, הפתוגנזה המרכזית של UC ממושכת היא חסר בטחול ובכליות (Fu-Zheng, חיזוק ה-qi החיוני) בשילוב עם הצטברות של לחות-חום במעיים (Qu-Xie, סילוק גורמים פתוגניים), ויישום סינרגי של שתי אסטרטגיות אלו חיוני לטיפול יעיל ב-UC.
מחקרים ניסיוניים קודמים אישרו כי JPF ו-QCF, שתי תת-נוסחאות ליבה של BJQF, מפעילות השפעות טיפוליות נגד UC. JPF משפרת דלקת רירית ושיבושים בתפקוד מחסום אפיתל המעי באמצעות נתיב השליח NF-κB/HIF-1α7, בעוד ש-QCF משחזרת את ההומאוסטזיס של מטבוליזם מיקרוביוטת המעי, מגנה על מחסום אפיתל המעי ומסדירה את נתיב NLRP3/IL-1β8. כדי לנתח את התרומות הביולוגיות הספציפיות של המודולים הפונקציונליים Fu-Zheng ו-Qu-Xie לציר מיקרוביוטת המעי–BA, מחקר זה תוכנן לכלול את נוסחת BJQF המלאה ושלוש תת-נוסחאות מפורקות: BSF (נוסחת Bushen, לחיזוק הטחול והכליות, Fu-Zheng טהור), JPF (נוסחת Jianpi, להמרצת הטחול, Fu-Zheng ליבה), ו-QCF (נוסחת Qingchang, לניקוי לחות-חום מהמעי, Qu-Xie טהור). עיצוב ניסיוני זה מאפשר לנתח את ההשפעות הסינרגיסטיות והבלתי תלויות של כל מודול פונקציונלי בטיפול ב-UC, דבר החיוני לתרגום מרשמי תרכובות של TCM לטיפול מבוסס ראיות.
ההשערה המנחה היא ש-BJQF משפר קוליטיס המושרה על ידי DSS באמצעות עיצוב מחדש של הרכב המיקרוביוטה במעי ונרמול מטבוליזם של חומצות מרה, וכי מודול ה-Jianpi משמש כרכיב התפקודי המרכזי המניע את ההשפעות הרגולטוריות על ציר המיקרוביוטה במעי–BA. מחקר זה תוכנן כדי לנתח באופן שיטתי את מנגנון ה-"compound-to-module" של BJQF. באמצעות הערכת הנוסחה המלאה והסב-מודולים הפיזיולוגיים הממוקדים התואמים לה, המחקר שואף לפענח את הסינרגיה הביולוגית של תרכובת TCM זו ולספק בסיס פרמקולוגי מודרני לטיפול ב-IBD על ידי ויסות ציר המטבוליזם של המיקרוביוטה במעי–חומצות מרה. במסגרת זו, היעילות הטיפולית של BJQF המלא ושלוש הנוסחאות התפקודיות המפורקות ממנו נגד UC המושרה על ידי DSS מושווית באופן שיטתי. בהינתן התפקיד המכריע של ציר המטבוליזם של המיקרוביוטה במעי–חומצות מרה בפתוגנזה של UC, עבודה זו מנתחת את מנגנון הסינרגיה של ה-compound-to-module של BJQF, מבהירה את התרומות הרגולטוריות הספציפיות של מודולי ה-Bushen, ה-Jianpi וה-Qingchang, ומאפיינת את השפעות העיצוב מחדש של כל מודול על הרכב המיקרוביוטה במעי ועל פרופילי חומצות מרה בצואה. המטרות המרכזיות הן לחשוף את הבסיס הביולוגי המודרני של BJQF בהקלה על UC, לזהות מטרות מיקרוביאליות-מטבוליות מרכזיות להתערבות TCM, ולספק ייחוס מכניסטי ליישום רציונלי ומחקר תרגומי של מרשמי TCM מורכבים ב-IBD.
פרוטוקול
ארבעים וארבעה חולדות זכרים בריאות מסוג Sprague-Dawley שמשקלן 200 ± 20 גרם הושגו לצורך המחקר. כל בעלי החיים שכנו בתנאים נקיים מפתוגנים ספציפיים (SPF) עם גישה חופשית לתזונה סטנדרטית של כופתיות ומים, ועברו אקלימטיזציה במשך שבוע אחד לפני הניסוי. כל נהלי רווחת בעלי החיים וההליכים הניסויים בוצעו בהתאם למדריך לטיפול ושימוש בבעלי חיים במעבדה שהוצא על ידי משרד המדע והטכנולוגיה של סין. המחקר אושר על ידי ועדת האתיקה בבעלי חיים של אוניברסיטת נאנג'ינג לרפואה סינית תחת מספר אישור 2023DW-029-01. פרטים מלאים על מקור בעלי החיים ואספקת הציוד לגידולם מופיעים ב- טבלת חומרים.
הכנת פורמולת ה-TCM
פורמולת ה-Bushen-Jianpi-Qingchang המלאה (BJQF) הורכבה מתשעה רכיבים צמחיים במינונים שנקבעו מראש: 15 g Astragali Radix, 10 g Atractylodis Macrocephalae Rhizoma מטוגן, 10 g Scutellariae Radix, 4 g Coptidis Rhizoma, 10 g Sanguisorbae Radix, 6 g Aucklandiae Radix, 5 g Glycyrrhizae Radix, 15 g Psoraleae Fructus, ו-15 g Alpiniae Oxyphyllae Fructus. כל חומרי הגלם הצמחיים הושרו בתמיסת סליין נורמלית למשך 1 h, ולאחר מכן בוצע תהליך דקודינציה (בישול) למשך 1 h עד לקבלת נפח סופי של 1500 mL. שלוש תת-פורמולות מפושטות הוכנו באמצעות פרוטוקול דקודינציה זהה. פורמולת ה-Bushen (BSF) הכילה 15 g Psoraleae Fructus ו-15 g Alpiniae Oxyphyllae Fructus, ובושלה לנפח סופי של 500 mL. פורמולת ה-Jianpi (JPF) הורכבה מ-15 g Astragali Radix, 10 g Atractylodis Macrocephalae Rhizoma מטוגן, ו-5 g Glycyrrhizae Radix, עם נפח דקודינציה סופי של 500 mL. פורמולת ה-Qingchang (QCF) consisted של 10 g Scutellariae Radix, 4 g Coptidis Rhizoma, 10 g Sanguisorbae Radix, ו-6 g Aucklandiae Radix, אשר הותאמה גם היא לנפח סופי של 500 mL. מפרטים מלאים של היצרן ומספרי אצווה עבור כל החומרים הצמחיים מופיעים בטבלת החומרים. נעשה שימוש עקבי בטרמינולוגיה צמחית גנרית לאורך הטקסט הראשי, כאשר פרטים ספציפיים של היצרן מוגבלים אך ורק לטבלת החומרים.
השראת קוליטיס וחולוקה לקבוצות ניסוי
החולקים חולקו באופן אקראי לשיש קבוצות ניסוי: קבוצת ביקורת (n = 6): מי שתייה רגילים + תמיסת סליין נורמלית במתן תוך-קיבתי. קבוצת מודל UC (n = 6): מי שתייה עם 3.5% (משקל/נפח) DSS + תמיסת סליין נורמלית במתן תוך-קיבתי. קבוצת טיפול ב-BJQF (n = 8): מי שתייה עם 3.5% DSS + מתן תוך-קיבתי של BJQF (במינון של 0.6 g/kg משקל גוף). קבוצת טיפול ב-BSF (n = 8): מי שתייה עם 3.5% DSS + מתן תוך-קיבתי של BSF (במינון של 0.6 g/kg משקל גוף). קבוצת טיפול ב-JPF (n = 8): מי שתייה עם 3.5% DSS + מתן תוך-קיבתי של JPF (במינון של 0.6 g/kg משקל גוף). קבוצת טיפול ב-QCF (n = 8): מי שתייה עם 3.5% DSS + מתן תוך-קיבתי של QCF (במינון של 0.6 g/kg משקל גוף).
קוליטיס ניסויית הושרה על ידי 3.5% DSS במי השתייה למשך 10 ימים רצופים; קבוצת הביקורת קיבלה מים מזוקקים ללא DSS. המינון של כל פורמולת TCM (במינון של 0.6 g/kg) הומר מהמינון היעיל הקליני למבוגר למינון שווה ערך בחולדה באמצעות שיטת נורמליזציה של שטח פני השטח של הגוף (נוסחת Meeh-Rubner). כמאחר שמדובר במחקר בשלב הגילוי המתמקד בהשוואה בין פורמולות, אומץ מינון קליני שווה ערך בודד. החל מהיום הראשון, כל פורמולת TCM ניתנה באופן תוך-קיבתי פעם ביום. קבוצות הביקורת והמודל קיבלו נפח זהה של תמיסת סליין נורמלית (10 mL/kg). ביום ה-11, החולדות נשחטו באמצעות פריקת צוואר. סרום, דגימות צואה ורקמות מעי הגס נאספו לצורך ניתוח. משקל הגוף נמדד מדי יום. כל הקבוצות תוכננו בתחילה עם n = 8. במהלך השראת ה-DSS, 2 חולדות בכל אחת מקבוצות הביקורת והמודל מתו עקב קוליטיס חמורה, מה שהוביל ל-n סופי של 6 עבור שתי קבוצות אלו. ניתוח עוצמה בדיעבד (Post-hoc power analysis) אישר כי גודל המדגם הסופי משיג עוצמה סטטיסטית של ≥ 0.8 עבור כל התוצאים הראשוניים (ציון היסטולוגי, ציטוקינים מרכזיים, משקל גוף), ובכך עומד בדרישות הסטטיסטיות הסטנדרטיות.
מדידת ריכוזי ציטוקינים דלקתיים
רמות סרום של IL-1β, IL-10 ו-TNF-α נמדדו באמצעות ערכות ELISA מסחריות, תוך הקפדה על פרוטוקולי היצרן. ערכי הצפיפות האופטית נקראו באמצעות קורא מיקרו-פלייטים אוטומטי. ניתוח סטטיסטי: ANOVA חד-כיווני לבדיקת הבדלים כלליים בין הקבוצות, ולאחריו תיקון Benjamini-Hochberg FDR להשוואות זוגיות לאחר מכן (post-hoc), בהתאם לניתוח נתוני omics.
הערכה היסטופתולוגית
דגימות רקמה מהמעי הגס קובעו ב-10% formalin, עברו דהידרציה, טמיעה בפרפין, חיתוך וצביעה ב-hematoxylin and eosin (HE). דירוג היסטולוגי בוצע באמצעות מערכת הדירוג המעודכנת של Cooper לקוליטיס, רובריקה חצי-כמותית מתוקפת עבור קוליטיס ניסויית9. הדירוג כולל ארבעה ממדים: חדירה דלקתית, נזק מבני לקריפטות, בצקת רירית והיקף כיב (ציון כולל 0–12). הצהרת סמיות: כל השקופיות הוסרו מהזיהוי וסומנו בקודים מספריים לפני הדירוג. שני פתולוגים עצמאיים, שאינם מודעים להקצאת הקבוצות, דירגו כל שקופית באופן עצמאי. הציון הסופי היה ממוצע שני הציונים; אי-הסכמות של ≥ 2 נקודות נפתרו על ידי פתולוג בכיר שלישי. בוצע מבחן ANOVA חד-כיווני עם תיקון Benjamini-Hochberg FDR להשוואות זוגיות, בהתאם לנתונים פנוטיפיים אחרים.
איסוף דגימות והפקת DNA
דגימות צואה טריות של חולדות נאספו למבחנות צנטריפוגה סטריליות של 1 mL, הוקפאו באופן מיידי ב-−80 °C, והובילו על קרח יבש. DNA גנומי של חיידקי צואה הופק מ-250 mg של צואה באמצעות DNA Isolation Kit בהתאם להוראות היצרן. ריכוז ה-DNA נמדד באמצעות ספקטרופוטומטר, ושלמותו אומתה באמצעות אלקטרופורזה על ג'ל אגרוזה 0.8%. בקרת באפר שלילית נכללה במהלך ההפקה והכימות. התמציות נשמרו ב- -20 °C לפני השימוש.
ריצוף גן 16S rRNA ואנליזה ביו-אינפורמטית
הגברה באמצעות PCR התמקדה באזורים ההיפרו-וריאבליים V3–V4 (338F–806R) של גן ה-16S rRNA. תוצרי ה-PCR טוהרו ורוצפו בפלטפורמת Illumina MiSeq באמצעות ריצוף paired-end של 2 × 300-bp. לאחר סינון איכות, התקבל ממוצע של 68,450 ± 28,297 קריאות נקיות באיכות גבוהה לדגימה (מקסימום 158,361, מינימום 28,294). הרצפים קובצו ל-OTUs ברמת דמיון של 97%. חושבו עקומות Rarefaction, מדדי עושר (richness) ומדדי שונות (diversity). ביצוע האנוטציה הטקסונומית בוצע באמצעות RDP Classifier. ניתוח PCoA המבוסס על מרחקי UniFrac וקיבץ היררכי בוצעו ב-R כדי להעריך את הדמיון בין הקהילות. אנליזת LEfSe בוצעה בפלטפורמת Galaxy כדי לזהות טקסונים בעלי שפע שונה (ספי): (ספי: LDA > 3, Kruskal-Wallis p < 0.05, post-hoc Wilcoxon p < 0.05). עבור השוואות מרובות של שפע מיקרוביאלי, הוחל תיקון Benjamini-Hochberg FDR; ערך של p(FDR) < 0.05 נחשב למשמעותי.
ניתוח LC-MS/MS של חומצות מרה בצואה
דגימת צואה של 20 mg הומוגניזה עם 200 µL מתנול. לאחר סנטריפוגציה, תרחף העליון רוכז, הומס מחדש ב-100 µL מתנול מימי בריכוז 50%, ונותח באמצעות LC-MS/MS. מערכת הגילוי כללה מערכת Shimadzu UPLC ומערכת Applied Biosystems 6500 QTRAP MS/MS. ניתוחים איכותיים וכמותיים בוצעו באמצעות עקומות כיול של סטנדרטים של חומצות מרה. PCA שימש להערכת ההפרדה של הפרופיל המטבולי. חומצות מרה דיפרנציאליות הוגדרו כ- VIP ≥ 1 ו-fold change ≥ 2 או ≤ 0.5. תרשימי כינור (Violin plots) שימשו להצגה חזותית של התפלגויות BA דיפרנציאליות. עבור השוואות מרובות, הוחל תיקון Benjamini-Hochberg FDR, בהתאמה לניתוח נתונים מיקרוביאליים.
ניתוח סטטיסטי
מתאם Spearman חושב באמצעות פונקציית cor ב-R. מובהקות המתאם נבדקה באמצעות פונקציית corPvalueStudent מחבילת ה-R ש-WGCNA. נתונים פנוטיפיים מוצגים כממוצע ± סטיית תקן (Mean ± SD). עבור כל ההשוואות בין קבוצות מרובות (פנוטיפיות, מיקרוביאליות, מטבוליות), הופעל מבחן ANOVA חד-כיווני עם תיקון Benjamini-Hochberg FDR עבור מבחני post-hoc. ערך p מתוקן < 0.05 נחשב למובהק סטטיסטית. כל הניתוחים בוצעו ב-GraphPad Prism 7.00 וב-R 4.2.0. חישוב עוצמה (power) של גודל המדגם בבדיקה רטרוספקטיבית (Post-hoc) בוצע באמצעות G*Power 3.1.
תוצאות
נוסחאות TCM מפחיתות דלקת ונזק קולוני נגרם על ידי DSS בקוליטיס
היעילות המגנה של נוסחאות TCM הוערכה תחילה באמצעות שינויים במשקל הגוף. בהשוואה לקבוצות הביקורת, קבוצת מודל ה-UC הראתה ירידה מתמשכת במשקל. BJQF, BSF, JPF ו-QCF הפחיתו באופן משמעותי את ירידה במשקל שנגרמה על ידי DSS (איור 1A). צביעת HE חשפה רירית קולונית תקינה והיעדר דלקת בקבוצות הביקורת. לעומת זאת, רקמת המעי הגס בקבוצת המודל הראתה עיוות אפיתלי חמור, הרס של הקריפטות וחדירה נרחבת של תאי דלקת ברירית ובסב-רירית. כל טיפולי ה-TCM קידמו התאוששות של הרקמה והפחיתו את הדלקת, כאשר BJQF הראה את השיפור הבולט ביותר (איור 1B–C). דירוג היסטולוגי כמותי אישש כי TCM הפחית באופן משמעותי את הנזק ההיסטופתולוגי (p < 0.05).
BJQF, BSF, JPF ו-QCF הפחיתו כולם את רמות ה-IL-1β (איור 1D) וה-TNF-α (איור 1F) בסרום בדרגות שונות. רמות ה-IL-10 בקבוצות הטיפול לא הגיעו לרמות של קבוצת הביקורת, אך היו גבוהות משמעותית מאלו של קבוצת המודל (איור 1E). תוצאות אלו מעידות על כך שפורמולות TCM מעכבות דלקת מעיים המושרה על ידי DSS.
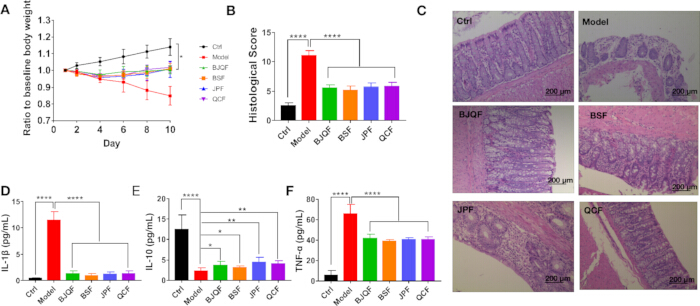
איור 1: השפעות טיפוליות של BJQF ותתי-נוסחאות המיצוי שלו על קוליטיס המושרה על ידי DSS בחולדות. (A) שינויים דינמיים ביחס של משקל הגוף למשקל הבסיס בכל קבוצה במהלך תקופת הניסוי שנמשכה 10 ימים; (B) ציונים היסטולוגיים כמותיים של רקמות מעי גס בכל הקבוצות הניסוייות; (C) חתכי רקמה מייצגים של מעי גס הצבועים בהמטוקסילין-אאוזין (HE) מכל קבוצה (סרגל קנה מידה = 200 µm); (D–F) ריכוזי סרום של ציטוקינים דלקתיים בכל קבוצה: (D) IL-1β, (E) IL-10, (F) TNF-α. הנתונים מוצגים כממוצע ± SD. *p < 0.05, **p < 0.01, ****p < 0.0001. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
טיפול ב-TCM מעצב מחדש את מבנה קהילת המיקרוביום במעי של חולדות עם UC
לאחר סינון איכות, התקבל ממוצע של 68,450 ± 28,297 קריאות נקיות באיכות גבוהה לדגימה. טיפול ב-TCM שינה את ה-α diversity הבקטריאלית (מדד Chao1, איור 2A). BJQF הפחית באופן משמעותי את ה-α diversity המוגברת בחולדות עם UC (p(FDR) < 0.05). מבין תתי-הנוסחאות, JPF הפחית באופן משמעותי את הגיוון (p(FDR) < 0.05), בעוד ש-BSF ו-QCF לא הראו השפעה משמעותית. עבור β diversity, ניתוח unweighted PCoA של מרחקי UniFrac הראה הפרדה ברורה בין הקבוצות, מה שמעיד על כך ש-TCM עיצב מחדש את ההרכב המיקרוביאלי הכולל (איור 2B). צבירה היררכית (Hierarchical clustering) הדגימה עוד יותר צבירה מובחנת בין קבוצת המודל לקבוצות הטיפול (איור 2C).
זוהו בסך הכל 13 מערכות, 22 מחלקות, 36 סדרות, 65 משפחות ו-158 סוגים. ברמת המערכה, Firmicutes, Bacteroidetes, Actinobacteria, Verrucomicrobia ו-Proteobacteria היו השולטות (>99% משפעוריות כוללת, איור 2D). Firmicutes הייתה דומיננטית בקבוצות הביקורת (86.98%), פחתה באופן משמעותי ב-UC (< 0.05 p(FDR)), וחודשה על ידי TCM (< 0.05 p(FDR)), כאשר BJQF הראתה את ההשפעה החזקה ביותר. Bacteroidetes ו-Proteobacteria עלו באופן משמעותי ב-UC והמגמה הופכה על ידי כל פורמולות ה-TCM. ברמת הסוג (שפעוריות >1%, איור 2E), Lactobacillus הייתה דומיננטית בביקורות (59.77%), פחתה באופן ניכר ב-UC (3.57%, < 0.05 p(FDR)), וחודשה על ידי TCM (< 0.05 p(FDR)). BJQF ו-JPF הראו השפעות חזקות יותר על שחזור ה-Lactobacillus. UC הגבירה גם את Bacteroides, Ruminococcus_2, Bifidobacterium ו-Blautia, והפחיתה את Enterorhabdus ו-Corynebacterium_1 — רובן הופכו על ידי TCM. באופן כללי, כל הפורמולות שיפרו את הדיסביוזיס המיקרוביאלי הקשור ל-UC, כאשר BJQF ו-JPF הראו את ההשפעות הבולטות ביותר.
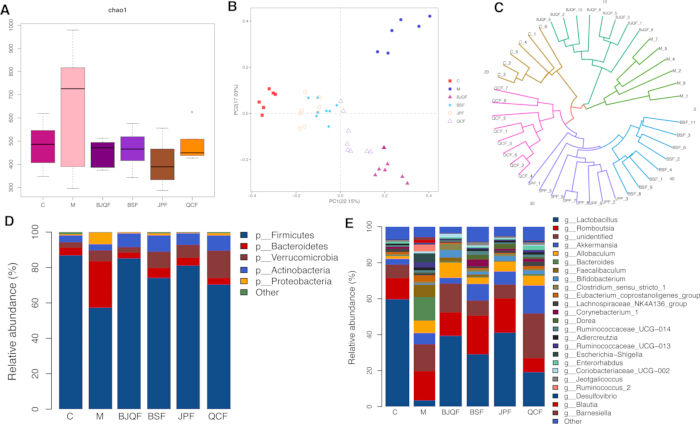
איור 2: הרכב מיקרוביוטת המעי בקבוצות. (Aמדד חיידקי α גיוון שנבחן באמצעות מדד Chao 1 (p(FDR) < 0.05 לעומת המודל); (B) PCoA של מרחקי UniFrac המבוססים על הרכב ושפע של OTU בקבוצות שונות; (C(ניתוח אשכולות היררכי המבוסס על מטריצת המרחקים; (ד'שפע יחסי ברמת המערכה (phylum)p(FDR) < 0.05 לעומת המודל); ו(השפע יחסי ברמת הסוג (p(FDR) < 0.05 לעומת המודל). אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
LEfSe מזהה טקסונים דיפרנציאליים הקשורים ל-UC ולקשרי TCM
ניתוח LEfSe בוצע כדי לזהות טקסונים המועשרים באופן דיפרנציאלי בין הקבוצות (LDA > 3, p < 0.05, איור 3). טקסונים שהועשרו ב-UC כללו את Bacteroidaceae, Bacteroides, Clostridiales, Clostridia, Bacteroidia, Bacteroidales, Bacteroidetes, Faecalibaculum, and Ruminococcaceae, בעיקר מתוך Bacteroidetes ו-Firmicutes. לאחר טיפול ב-TCM, רוב הטקסונים שהועשרו ב-BJQF השתייכו ל-Firmicutes, כאשר רק Bifidobacteriaceae, Bifidobacteriales, ו-Bifidobacterium השתייכו ל-Actinobacteria. טקסונים שהועשרו ב-BSF היו גם הם בעיקר Firmicutes. טקסונים שהועשרו ב-JPF, כגון Turicibacter ו-Dorea, השתייכו ל-Firmicutes. QCF הראה את ההעשרה החזקה ביותר של Verrucomicrobia (כולל Akkermansia), מה שמעיד על רגישות גבוהה של מנח (phylum) זה להתערבות של QCF. באופן כללי, Firmicutes היה המנח בעל התגובה הגבוהה ביותר ל-BJQF, BSF ו-JPF.
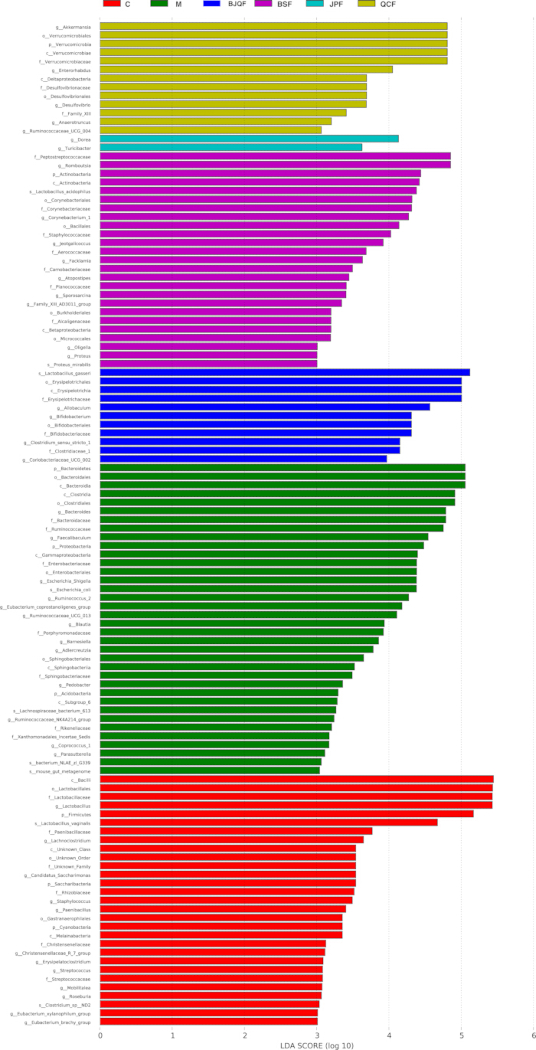
איור 3: LEfSe זיהה את ה-OTUs בעלי השפע השונה ביותר בין הקבוצות השונות. הבדלים משמעותיים במדדי LDA (p < (0.05) נוצרו בין מחלקות (מבחן Kruskal–Wallis) ובין תתי-מחלקות (מבחן Wilcoxon). טקסונים דיפרנציאליים נקבעו על בסיס ציון סף LDA של > 3 ורמת מובהקות סטטיסטית של 0.05. (p: מערכה c: מחלקה o: סדרה f: משפחה g: סוג). אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
התערבות באמצעות TCM מנרמלת את פרופי חומצות המרה בצואה של חולדות עם UC
בהינתן ספיגה לקויה של BA ב-IBD, השתמשו המחברים ב-LC-MS/MS כדי לכמת BAs בצואה. PCA הראה הפרדה ברורה בין קבוצת הביקורת לקבוצת המודל, בעוד שכל קבוצות הטיפול התקבצו קרוב יותר לקבוצות הביקורת, מה שמעיד על נורמליזציה חלקית של מטבוליזם של BA (איור 4A). ה-BAs שהשתנו בצורה המשמעותית ביותר בקבוצת המודל היו LCA-3S מוגבר ו-GDCA מופחת (איור 4B). לאחר הטיפול, ה-BAs בעלי העלייה המשמעותית ביותר היו ILCA (BJQF), GCDCA (BSF), DLCA (JPF), ו-GCDCA (QCF); ה-BAs בעלי הירידה המשמעותית ביותר היו TLCA-3S (BJQF), LCA-3S (BSF), LCA-3S (JPF), ו-TLCA-3S (QCF) (איור 4C–F). תרשימי כינור (Violin plots) הציגו ויזואלית BAs דיפרנציאליים משותפים בין הקבוצות (איור 5). באופן בולט, כל נוסחאות ה-TCM העלו את רמות ה-23-DCA, 3-oxo-DCA, ו-DLCA, והפחיתו את רמות ה-HCA, LCA-3S, TCA, ו-TLCA-3S.
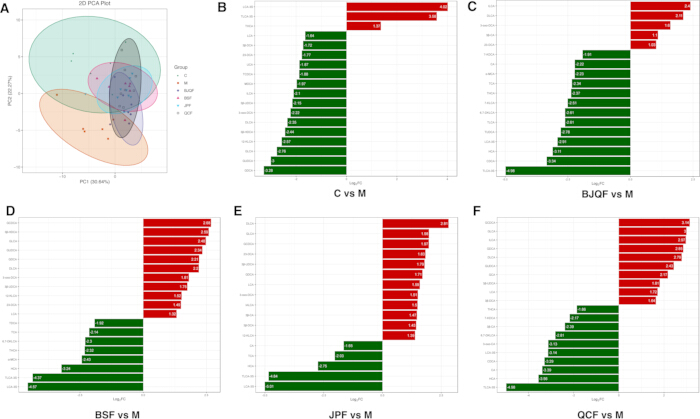
איור 4: נוסחאות TCM ויסתו הפרעה בחומצות מרה שנוצרה על ידי DSS במודל של UC. (A) תרשים PCA של חומצות מרה בקבוצות Control, Model, BJQF, BSF, JPF, ו-QCF. (B) תרשים עמודות של שינוי קיפול (fold change) בקבוצת Model לעומת Control. (C) תרשים עמודות של שינוי קיפול בקבוצת BJQF לעומת Model. (D) תרשים עמודות של שינוי קיפול בקבוצת BSF לעומת Model. (E) תרשים עמודות של שינוי קיפול בקבוצת JPF לעומת Model, ו-(F) תרשים עמודות של שינוי קיפול בקבוצת QCF לעומת Model. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
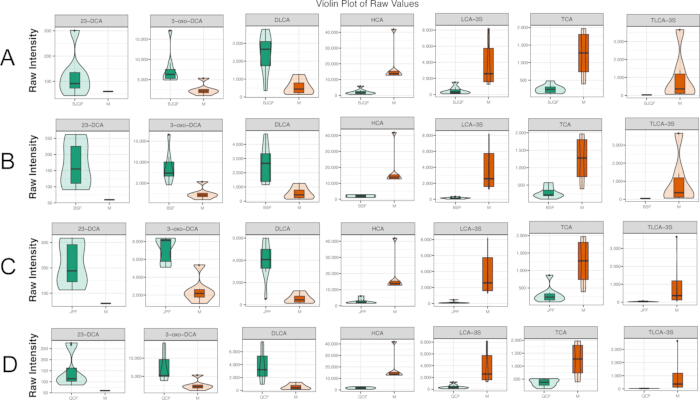
איור 5: תרשים כינור של BAs דיפרנציאליים בכל קבוצת השוואה. (A) BAs דיפרנציאליים ב-BJQF לעומת Model. (B) BAs דיפרנציאליים ב-BSF לעומת Model. (C) BAs דיפרנציאליים ב-JPF לעומת Model ו-(D) BAs דיפרנציאליים ב-QCF לעומת Model. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
מתאם בין חומצות מרה בעששית לבין שפע מיקרוביאל במעי
ניתוח מתאמי Spearman בוצע בין מעמדות (phyla) דיפרנציאליים לבין חומצות מרה (BAs) דיפרנציאליות (איור 6A–F, איור 7A–D). תרשימי מיתרים (Chord charts) מראים מתאמים עם |r| ≥ 0.8 (איור 6B, 6D, 6F). בהשוואה בין קבוצת המודל לקבוצת הביקורת, 23-DCA נמצא במתאם חיובי עם Saccharibacteria ו-Firmicutes, ובמתאם שלילי עם Proteobacteria ו-Bacteroidetes (איור 6B). בהשוואה בין קבוצת BJQF לקבוצת המודל, Proteobacteria נמצאו קשורות ל-TLCA-3S, LCA-3S, TCA, α-MCA, 6,7-DKLCA, HCA, CDCA ו-THCA (איור 6D). בהשוואה בין קבוצת BSF לקבוצת המודל, Proteobacteria נמצאו במתאם חיובי עם TDCA, 6,7-DKLCA ו-LCA-3S; Saccharibacteria נמצאו במתאם חיובי עם GUDCA ו-23-DCA (איור 6F).
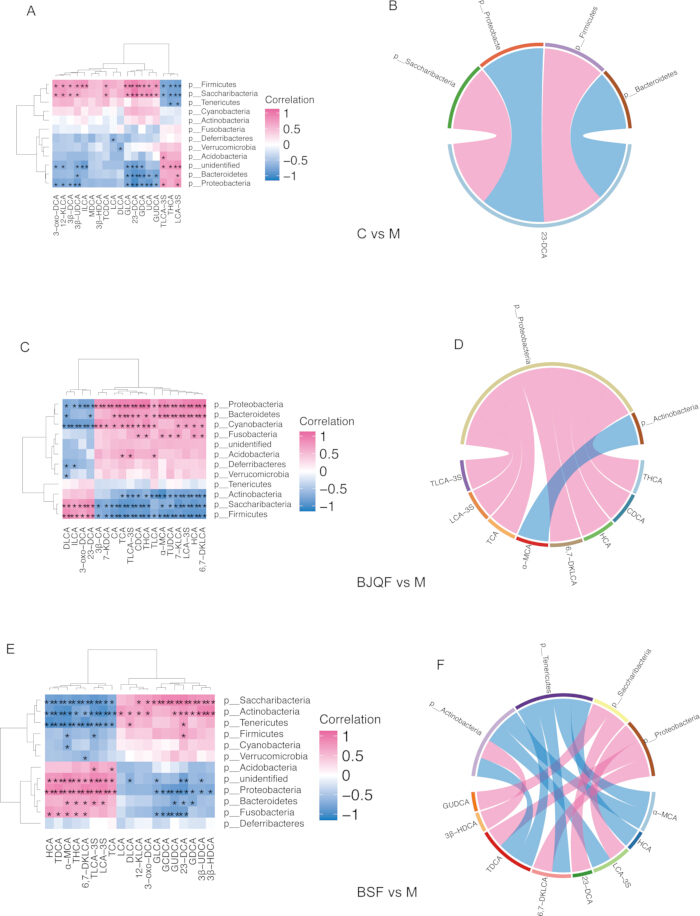
איור 6: מתאמים בין חומצות מרה (BAs) дифרנציאליות בצואה לבין השפעות של חיידקים дифרנציאליים ברמת הפylum. (A, C, E) ניתוחי מתאם של Spearman עבור קבוצות הביקורת (Control) מול המודל (Model), BJQF מול המודל, ו-BSF מול המודל, בהתאמה. (B, D, F) תרשימי חבלים (chord charts) תואמים הממחישים מתאמים חזקים (|r| ≥ 0.8) עבור קבוצות הביקורת מול המודל, BJQF מול המודל, ו-BSF מול המודל, בהתאמה. אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
תרשימי מיתרים (Chord charts) מראים מתאמים של |r| ≥ 0.8 (איור 7B, 7D). בהשוואה בין JPF למודל, Saccharibacteria היה קשור באופן שלילי ל-TLCA-3S, LCA-3S ו-HCA, ובעל מתאם חיובי עם 23-DCA (איור 7B). בהשוואה בין QCF למודל, Saccharibacteria היה בעל מתאם שלילי עם HCA, CA, LCA-3S, THCA ו-TLCA-3S, ומתאם חיובי עם 23-DCA (איור 7D). תוצאות אלו מעידות על כך שנוסחאות TCM שונות מווסתות את רשת האינטראקציה בין החיידקים ל-BA באמצעות דפוסים נבדלים.
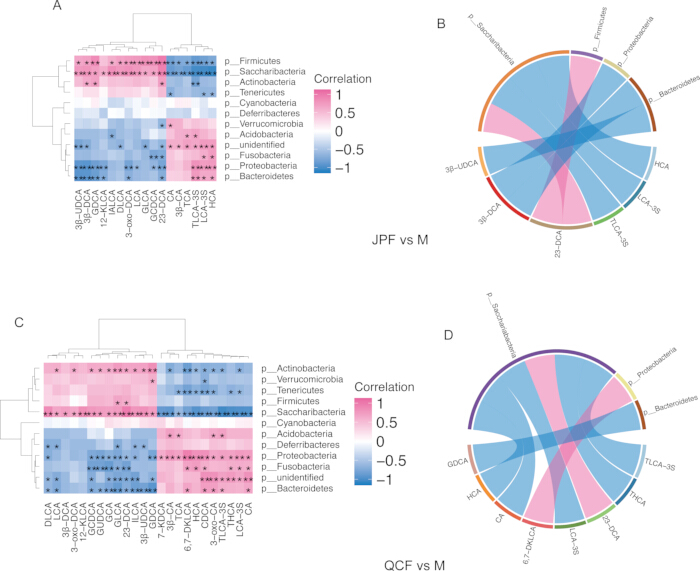
איור 7: מתאמים בין חומצות מרה (BAs) דיפרנציאליות בצואה לבין שפע של חיידקים דיפרנציאליים. (A, C) ניתוחי מתאם Spearman עבור קבוצות JPF מול Model ו-QCF מול Model, בהתאמה. (B, D) תרשימי חבלים (chord charts) תואמים הממחישים מתאמים חזקים (|r| ≥ 0.8) עבור קבוצות JPF מול Model ו-QCF מול Model, בהתאמה. אדום מציין מתאמים חיוביים, בעוד שכחול מציין מתאמים שליליים. p < 0.05, p < 0.01. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
זמינות נתונים:
כל הנתונים הגולמיים הועלו למסד הנתונים NCBI Sequence Reads Archive (SRA) (מספר גישה: PRJNA749732). https://www.ncbi.nlm.nih.gov/bioproject/PRJNA749732
דיון
מחקר זה בוחן את המנגנון הטיפולי של BJQF ותתי-הנוסחאות המפורקות שלו בהפגת UC המושרה על ידי DSS דרך ציר המטבוליזם של מיקרוביוטת המעי וחומצות מרה (BA). ניתוח מולטי-אומיקה זה מצביע על כך ש-BJQF מפעיל השפעות אנטי-קוליטיות על ידי שיקום הדיסביוזיס המיקרוביאלי הקשור ל-UC ונורמליזציה של מאגר ה-BA בצואה. תתי-הנוסחאות שלו מראים השפעות רגולטוריות ספציפיות למודולים, כאשר JPF מראה יעילות הדמימה ביותר לנוסחה המלאה, מה שחושף את התפקיד המרכזי של אסטרטגיית ה-Jianpi. המחברים מזהים גם את 23-DCA כצומת BA מפתח המקשר בין עיצוב מחדש של המיקרוביום לבין שיפור ב-UC, ואת TLCA-3S/LCA-3S כסמנים ביולוגיים פוטנציאליים ליעילות.
שיקום של דיסביוזיס מיקרוביאלית המתווך על ידי BJQF קשור פוטנציאלית לנורמליזציה של מאגר ה-BA ולהפחתה בדלקת. UC מונעת על ידי הפרה של רשת החיסון-מיקרוביוטה-מטבוליזם, וחוסר איזון במערכות (phyla) ליבה הוא מאפיין טיפוסי הן בחולים והן במודלים של בעלי חיים10. תוצאות אלו מאשרות כי חולדות עם UC המושרה על ידי DSS מראות ירידה ב-Firmicutes וב-Lactobacillus, ועלייה ב-Bacteroidetes וב-Proteobacteria — דבר העולה בקנה אחד עם פרופילים קליניים של UC11. BJQF ו-JPF הפכו את חריגות אלו בצורה היעילה ביותר, בעוד ש-BSF ו-QCF הראו השפעות מתונות. בהתחשב בכך שמוסקי (taxa) Firmicutes כגון Lactobacillus ו-Clostridium מתועדים היטב כנושאי המכניקה האנזימטית הליבתית לביוסינתזה של BA משנייה12, הדבר מצביע על קשר אסוציאטיבי פוטנציאלי: BJQF, ובמיוחד מודול ה-Jianpi שלו, משחזר Firmicutes בעלי יכולת ביוסינתזה של BA, מה שעשוי להגביר את הביוטרנספורמציה של BA משנייה ולתקן הפרעות מטבוליות. ברמת הסוג (genus), BJQF ו-JPF הפכו גם שינויים ב-Bacteroides, Ruminococcus_2, Enterorhabdus ו-Corynebacterium_1 המושרים על ידי UC, ובכך תיקנו עוד יותר את הדיסביוזיס ואת התפקודים הקשורים לסינתזת BA.
שיקום של דיסביוזה מיקרוביאלית עשוי לתרום לנרמול מאגר ה-BA, מנגנון מטבולי מרכזי של השפעות אנטי-קוליטיות. מטבוליזם של BA תלוי מאוד בפעילות מיקרוביאלית, ו-BAs שניוניים חיוניים להומאוסטזיס חיסוני ולשלמות מחסום הרירית13. נתוני ה-LC-MS/MS מראים כי חולדות עם UC מציגות רמות מופחתות של BAs שניוניים מגנים (23-DCA, 3-oxo-DCA, DLCA) והצטברות של BAs מסולפטים (TLCA-3S, LCA-3S) — ממצא העולה בקנה אחד עם דיווחים קודמים על הפרה בבקרת BA הקשורה ל-UC14. ל-BAs מסולפטים יש ספיגה מעית רק נמוכה והם אינם יכולים להיכנס למחזור אנטרו-הפאטי15, שכן הצטברותם משקפת מטבוליזם לקוי של BA וקשורה להפעלה של מסלולים פרו-דלקתיים16. כל הנוסחאות הפכו הפרעה זו, כאשר BJQF ו-JPF הראו את ההשפעות החזקות ביותר.
ניתוח מתאמים מאשר כי 23-DCA הוא צומת ה-BA המרכזי הקשור לשינויים בפולות הליבה: הוא נמצא במתאם חיובי עם Firmicutes ובמתאם שלילי עם Proteobacteria. כ-BA משני בעל השפעות אנטי-דלקתיות ומגנות על מחסומי המעי17, ייתכן כי העלייה בביטוי של 23-DCA על ידי BJQF/JPF מיוחסת להעשרה של Firmicutes ולביו-סינתזה מוגברת, והיא נמצאת במתאם עם הפחתה ברמות הציטוקינים ושיפור בהיסטולוגיה. על בסיס ממצאי מתאמים אלו, המחברים מציעים מודל מכניסטי היפותטי: BJQF משחזר את שפע ה-Firmicutes > מגביר את הביו-סינתזה המיקרוביאלית של BA משני > מעלה את ביטויו של 23-DCA המגן > מעכב דלקת במעי. מודל זה טרם תוקף באמצעות ניסויי תפקוד.
מחקר זה מגשר בין תיאוריות של הרפואה הסינית המסורתית (TCM) לבין ביולוגיה מולקולרית מודרנית, על ידי מיפוי של מודולים פונקציונליים של BJQF לשינויים מיקרוביאליים ומטבוליים ספציפיים. מושג ה-Jianpi מהווה את חוליית הקישור המרכזית. בהתאם לתיאוריית ה-TCM בדבר "חיזוק הדדי בין הטחול לכליות"18, ה-BSF הראה העשרה מתונה של Firmicutes ועלייה בביטוי של 23-DCA. ה-QCF העשיר בעיקר Verrucomicrobia (Akkermansia) וויסת את מטבוליזם של קסנוביוטיקה, דבר המשקף את אפקט "פינוי לחות-חום". הנוסחה המלאה מפעילה השפעות סינרגטיות העולות על כל מודול בודד, ובכך מאששת את הרציונליות של תכנון תרכובות TCM המבוסס על בידול תסמונות.
ניתוח מתאמים חושף עוד רשתות אינטראקציה נבדלות בין חיידקים ל-BA המעוצבות על ידי כל פורמולה. הבדלים אלו משקפים מאפיינים רגולטוריים ספציפיים למודולים ומספקים בסיס ליישום קליני מותאם אישית: JPF עבור UC עם דומיננטיות של חסר בטחול ודיסביוזיס המתרכז ב-Firmicutes, QCF עבור UC עם דומיננטיות של חום-לחות ונזק למחסום הריריות, ו-BJQF מלא עבור התסמונת המשולבת הקלאסית. בהתאמה לממצאים, מחקרים אחרונים תומכים גם הם בציר מיקרוביוטת המעי–חומצות מרה כיעד טיפולי מרכזי עבור UC והתערבות של TCM19,20,21,22. מחסור ב-BA משני המונע על ידי דיסביוזיס מיקרוביאלי הוא מאפיין ליבה של UC פעילה, ושחזור הומיאוסטזיס של BA יכול להקל ביעילות על הדלקת והנזק הרירי23.
למחקר זה מספר מגבלות. ראשית, כל הקשרים בין עיצוב מחדש של המיקרוביומ לבין נורמליזציה של BAs מבוססים על ניתוח רב-אומיקה (multi-omics) קורלטיבי; קשרים סיבתיים לא תוקפו באמצעות ניסויים פונקציונליים כגון השתלת מיקרוביוטה צואית. שנית, גודל המדגם בינוני יחסית, מה שעשוי להגביל את העוצמה הסטטיסטית ואת היכולת להכליל את הממצאים. שלישית, רק BAs צואתיים נמדדו; פרופילים של BAs בסרום וברירית, המשקפים את המחזור האנטרו-הפטי, לא נמדדו. רביעית, פיטוכימיקלים פעילים ספציפיים האחראים לוויסות המיקרוביוטה וה-BA טרם זוהו. עבודה עתידית תתקף קשרים סיבתיים באמצעות FMT וניסויי בעלי חיים נטולי חיידקים (germ-free), תזהה רכיבים פעילים מרכזיים של BJQF, ותבצע מחקרי פיילוט קליניים כדי לאמת את הערך התרגומי.
גילויים
למחברים אין ניגודי עניינים להצהיר עליהם.
תרומת המחברים:
Hongyu Chen תרם להגייה הרעיונית, למתודולוגיה, לתיקוף, לניתוח פורמלי, לחקירה, לוויזואליזציה ולכתיבת הטיוטה המקורית של כתב היד. Song Zhao תרם למתודולוגיה, לניהול הפרויקט, לחקירה, לוויזואליזציה, לגיוס מימון ולכתיבת הטיוטה המקורית. Luzhou Xu תרם להגייה הרעיונית, לאספקת משאבים, לביקורת ועריכה של כתב היד, לניהול הפרויקט ולפיקוח הכללי על המחקר.
תודות
עבודה זו נתמכה על ידי הקרן הלאומית למדעים טבעיים של סין (81774243).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| מבחנות PCR בנפח 0.2 mL | Axygen | PCR-02-C | עבור תגובות הגברה של גן 16S rRNA ב-PCR |
| מבחנות צנטריפוגה סטריליות בנפח 1.5 mL | Axygen | MCT-150-C | מכלים סטריליים לאיסוף דגימות, אחסון וצנטריפוגה |
| פורמלין ניטרלי בבופר בריכוז 10% | Solarbio Science & Technology | 1008128 | עבור קיבוע של דגימות רקמת מעי גס |
| מערכת 6500 QTRAP MS/MS | Sciex | 5009065 | עבור פרופיל כמותי מבוסס MRM של חומצות מרה בצואה |
| מקפיא בטמפרטורה נמוכה במיוחד של -80 ºC | Thermo Fisher Scientific | 702-UR | עבור קריו-שימור של דגימות צואה ודגימות ביולוגיות |
| אגרוז | Sigma-Aldrich | A9539 | עבור זיהוי שלם של DNA באמצעות אלקטרופורזה של ג'ל |
| Alpiniae Oxyphyllae Fructus | Nanjing TCM Co., Ltd. | Batch 20230321 | חומר צמחי גולמי, 15 g למינון, משמש ב-BJQF וב-BSF |
| Astragali Radix | Nanjing TCM Co., Ltd. | Batch 20230312 | חומר צמחי גולמי, 15 g למינון, משמש ב-BJQF וב-JPF |
| Aucklandiae Radix | Nanjing TCM Co., Ltd. | Batch 20230217 | חומר צמחי גולמי, 6 g למינון, משמש ב-BJQF וב-QCF |
| תערובת סטנדרטים של חומצות מרה | Sigma-Aldrich | B4893 | עבור כיול איכותני וכמותי של חומצות מרה בצואה |
| Coptidis Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230118 | חומר צמחי גולמי, 4 g למינון, משמש ב-BJQF וב-QCF |
| Dextran sulfate sodium (DSS, 36–50 kDa) | MP Biomedicals | 160110 | עבור השראת UC בחולדות, הומאן כתמיס של שתייה בריכוז 3.5% (משקל/נפח) למשך 10 ימים רצופים |
| Glycyrrhizae Radix | Nanjing TCM Co., Ltd. | Batch 20230411 | חומר צמחי גולמי, 5 g למינון, משמש ב-BJQF וב-JPF |
| GraphPad Prism | GraphPad Software | v7.00 | עבור ניתוח סטטיסטי, בדיקת מובהקות ושרטוט גרפים מדעיים |
| ערכה לצביעת Hematoxylin-Eosin (H&E) | Beyotime Biotechnology | C0105S | עבור צביעת חיתוכי רקמת מעי גס, תצפית היסטופתולוגית ודירוג דלקת |
| צנטריפוגה מקוררת במהירות גבוהה | Eppendorf | 5810R | עבור צנטריפוגה של דגימות בהפקת חומצות גרעיניות ובהכנה למטבולינומיקה |
| מתנול בדרגת HPLC | Merck KGaA | 1.06007.4008 | עבור הכנת דגימות LC-MS/MS והכנת פאזה ניידת |
| פלטפורמת ריצוף Illumina MiSeq | Illumina Inc. | SY-410-1003 | עבור ריצוף בעלת תפוקה גבוהה של גן 16S rRNA ופרופיל של מיקרוביוטת המעי |
| מאגר נתונים KEGG | Kanehisa Laboratories | Release 107.0 | עבור אנוטציה של מסלולים תפקודיים מיקרוביאליים |
| חולדות SD זכרים בדרגת SPF | Shanghai Xipu-Bikai Experimental Animal Co., Ltd. | / | 44 חולדות במשקל 200 ± 20 g, לבניית מודל UC וניסויי מעקב |
| קורא לוחות Multiskan™ GO | Thermo Fisher Scientific Oy | 51119080 | עבור קריאת בליעה ב-ELISA וכימות ציטוקינים |
| ספקטרופוטומטר NanoDrop 2000 | Thermo Fisher Scientific | ND-2000 | עבור כימות והערכת טוהר של DNA גנומי של חיידקי צואה |
| קסטות להטמעה בפראפין | Leica Biosystems | 3801520 | עבור דהידרטציה של רקמת מעי גס והטמעה בפראפין |
| ערכה לבידוד DNA מסוג PowerFecal® | MoBio (Qiagen) | 12830-50 | עבור הפקה וטיהור של DNA גנומי של חיידקי צואה |
| Psoraleae Fructus | Nanjing TCM Co., Ltd. | Batch 20230129 | חומר צמחי גולמי, 15 g למינון, משמש ב-BJQF וב-BSF |
| סביבת הסטטיסטיקה R | R Foundation for Statistical Computing | v4.2.0 | עבור ניתוח ביו-אינפורמטי וחישוב סטטיסטי |
| ערכת ELISA ל-IL-10 בחולדה | Lun Chang Shuo Biotech | YD-30194 | עבור זיהוי כמותי של ריכוז IL-10 בסרום |
| ערכת ELISA ל-IL-1β בחולדה | Lun Chang Shuo Biotech | YD-30206 | עבור זיהוי כמותי של ריכוז IL-1β בסרום |
| ערכת ELISA ל-TNF-α בחולדה | Lun Chang Shuo Biotech | YD-31063 | עבור זיהוי כמותי של ריכוז TNF-α בסרום |
| Sanguisorbae Radix | Nanjing TCM Co., Ltd. | Batch 20230309 | חומר צמחי גולמי, 10 g למינון, משמש ב-BJQF וב-QCF |
| Scutellariae Radix | Nanjing TCM Co., Ltd. | Batch 20230407 | חומר צמחי גולמי, 10 g למינון, משמש ב-BJQF וב-QCF |
| מערכת Shim-pack UFLC UPLC | Shimadzu Corporation | CBM-20A | עבור הפרדה כרומטוגרפית של דגימות חומצות מרה בצואה |
| Stir-fried Atractylodis Macrocephalae Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230225 | חומר צמחי גולמי, 10 g למינון, משמש ב-BJQF וב-JPF |
מקורות
- Gilbert JA, et al. Current understanding of the human microbiome. Nat Med. 2018;24(4):392-400.
- Fiorucci S, et al. Bile acid signaling in inflammatory bowel diseases. Dig Dis Sci. 2021;66(3):674-693.
- Sinha SR, et al. Dysbiosis-induced secondary bile acid deficiency promotes intestinal inflammation. Cell Host Microbe. 2020;27(4):659-670.e5.
- Zhan K, et al. Gut microbiota-bile acid crosstalk in diarrhea-irritable bowel syndrome. Biomed Res Int. 2020;2020:3828249.
- Zhang C, Jiang M, Lu A. Considerations of traditional Chinese medicine as adjunct therapy in the management of ulcerative colitis. Clin Rev Allergy Immunol. 2013;44(3):274-283.
- Zhang S, et al. Consensus on Chinese medical diagnosis and treatment of ulcerative colitis (2009). Chin J Integr Tradit West Med. 2010;30(5):527-532.
- Chen YL, et al. Systems pharmacology approach reveals protective mechanisms of Jian-Pi Qing-Chang decoction on ulcerative colitis. World J Gastroenterol. 2019;25(21):2603-2622.
- Hu J, et al. Qingchang Huashi Formula attenuates DSS-induced colitis in mice by restoring gut microbiota-metabolism homeostasis and goblet cell function. J Ethnopharmacol. 2021;266:113394.
- Cooper HS, et al. Clinicopathologic study of dextran sulfate sodium experimental murine colitis. Lab Invest. 1993;69(2):238-249.
- Zuo T, Ng SC. The gut microbiota in the pathogenesis and therapeutics of inflammatory bowel disease. Front Microbiol. 2018;9:2247.
- Kobayashi T, et al. Ulcerative colitis. Nat Rev Dis Primers. 2020;6(1):74.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41-50.
- Joyce SA, Gahan CGM. Bile acid-microbiota crosstalk in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(11):694-707.
- Duboc H, et al. Connecting dysbiosis, bile-acid dysmetabolism and gut inflammation in inflammatory bowel diseases. Gut. 2013;62(4):531-539.
- Alnouti Y. Bile acid sulfation: A pathway of bile acid elimination and detoxification. Toxicol Sci. 2009;108(2):225-246.
- Ungaro R, et al. Ulcerative colitis. Lancet. 2017;389(10080):1756-1770.
- Tang Y, Li Y, Zhang L, et al. 23-Deoxycholic acid ameliorates colitis by regulating gut microbiota and activating FXR signaling. J Ethnopharmacol. 2022;298:115463.
- Lu YH, Cong LL, Zhang Y. TCM syndrome classification and its correlation with gut microbiota in ulcerative colitis. Chin J Integr Tradit West Med. 2020;40(7):867-871.
- Zhang Y, Li X, Wang H. Traditional Chinese medicine for inflammatory bowel disease: From empirical therapy to mechanism-based treatment. J Ethnopharmacol. 2022;296:115347.
- Li J, Wang Y, Zhang L, et al. Targeting the gut microbiota-bile acid axis: a novel strategy for TCM compound prescriptions in treating chronic inflammatory diseases. Pharmacol Res. 2023;192:106589.
- Abdo W, et al. Gut Microbiota and Bile Acid Metabolism in Inflammatory Bowel Disease: Pathophysiological Links and Therapeutic Implications. Arch Med Res. 2023;54(8):789-801.
- Liu M, et al. Traditional Chinese Medicine Targeting Gut Microbiota-Bile Acid Axis for Ulcerative Colitis: A Systematic Review. Arch Med Res. 2022;53(6):542-553.
- Chen L, et al. Secondary Bile Acids as Key Mediators of Intestinal Mucosal Barrier Protection in Inflammatory Bowel Disease. Arch Med Res. 2023;54(2):189-200.