פרוטוקול זה מתאר הקלטה אלקטרופיזיולוגית חוץ-תאית של אותות קצב שחייה שהופעלו חזותית מהרופליום (rhopalium) המבודד של מדוזת הקופסה Tripedalia cystophora, ובכך מספק מדד כמותי של התנהגות הימנעות ממכשולים לצורך חקירה מדויקת של עיבוד מידע חזותי ואינטגרציה סנסורית-מוטורית.
מאמר שיטה
הקלטה אלקטרופיזיולוגית חוץ-תאית של אותות קצב שחייה שעוררו באופן חזותי מהרופליום המבודד של Tripedalia cystophora
במאמר זה
סיכום
תקציר
בנדיבת הקופסה Tripedalia cystophora משלבת עיני עדשה יוצרות תמונה והתנהגויות מודרכות חזותית המאופיינות היטב עם מערכת עצבים רופליאלית נגישה הכוללת כ-100 נוירונים, מה שהופך אותה למודל מבטיח למחקר ברמת המערכת של עיבוד מידע חזותי ואינטגרציה סנסורי-מוטורית. נוירוני קצב של השחייה מייצרים פקודות מוטוריות השולטות ישירות בהתכווצויות הפעמון, ואות אלו ניתנים להקלטה חוץ-תאית מעצב הגבעול האפידרמלי של רופליום מבודד, מה שמהווה מדד כמותי לפלט מוטורי המונע חזותית. עוצמת תגובת קצב הפעולה, המכומת כפעילות עצבית סטנדרטית הנגזרת מספירת אותות הקצב ומהתדר הרגעי, עולה ביחס לניגודיות הגירוי מעל סף מעבר ההחלטה (DTT), מה שמאפשר הערכה מדורגת של אינטגרציה סנסורי-מוטורית המונעת חזותית. בפרוטוקול זה, אנו סוקרים את ייצור אלקטרודות יניקה חוץ-תאיות, בידוד רופליום, הגדרת תא הקלטה, הגשת גירוי חזותי לעין העדשה התחתונה, אימות תזמון הגירוי ברמת החומרה, מיקום אלקטרודות על עצב הגבעול האפידרמלי, ורכישת נתונים אלקטרופיזיולוגיים ונתוני גירוי מסונכרנים באמצעות ציוד מעבדה סטנדרטי.
מבוא
הבנת האופן שבו מערכות עצביות מעבדות מידע חושי ומתרגמות אותו להתנהגות 적אדפטיבית היא אתגר מרכזי במדעי העצבים. התקדמות משמעותית הושגה באורגניזמי מודל גדולים ומורכבים, כגון Drosophila melanogaster, שמוחו, המורכב מכ-200,000 נוירונים, אפשר ניתוח מפורט של ארגון המעגלים העצביים1, לצד מודלים אחרים הניתנים לתلاعب גנטי עם כלים מתקדמים לדימיון ומיתוך מעגלים. עם זאת, עצם המורכבות של מערכות אלה מקשה על השגת הבנה מלאה ברמת המערכת של הקשר בין קלט חושי, חישוב עצבי ופלט התנהגותי. בקצה השני של ספקטרום המורכבות, מערכות קטנות שומפו מלאי, כגון זו של Caenorhabditis elegans, המורכבת מ-302 נוירונים2, לצד מודלים אחרים עם מספר נוירונים מינימלי, מציעות גודל נגיש לניתוח אך חסרות עיניים היוצרות תמונה והתנהגויות מונחות ראייה התלויות בהן.
Tripedalia cystophora, מדוזת הקובייה הקריבית (איור 1A), הופכת למערכת מודל לעיבוד מידע חזותי ברמת המערכות ולאינטגרציה סנסורי-מוטורית, תוך שהיא תופסת עמדה ייחודית בין שני הקצוות הללו3. הפרוטוקול המתואר כאן (איור 1) נועד להנגיש את מלוא הפוטנציאל הניסויי של בעל חיים זה לקהילת מדעי המוח הרחבה.
T. cystophora מחזיקה במערכת חזותית בעלת תחכום יוצא דופן עבור בעל חיים בעל מורכבות עצבית כזו. כל אחד מארבעת המבנים החושיים הנקראים rhopalia נושא שש עיניים, כולל שתי עיניים בעלות עדשה יוצרות תמונה: העין העליונה (ULE) והעין התחתונה (LLE)4 (איור 1B). אלו אינם איברים פשוטים הקולטים אור — הם מצוידים בעדשה בעלת מדד שבירה מדורג מסוג Matthiessen, עיצוב עדשה הנמצא גם בעיני חוליית-חוש, וברשתית הפוכה שבה כ-600 פטורצפטורים ב-LLE וכ-400 ב-ULE מתחברים ישירות לנוירונים מסדר שני5,6,7. ההרכב המולקולרי של מנגנון קליטת האור, כולל cnidops opsins ההומולוגיים ל-c-opsins של חוליית-חוש ומרכיבי פוטוטרנסדוקציה נלווים8,9,10, מרמז בצורה חזקה כי אלו הם פטורצפטורים היפר-פולריזציוניים, מה שממקם את המערכת החזותית של T. cystophora באותה קטגוריה תפקודית רחבה של עין חוליית-חוש, למרות מקורה האבולוציוני העצמאי.
באופן קריטי, השקעות אופטיות אלו מלוות בהתנהגויות מורכבות, ניתנות לאפיון ניסויי ומונחות ראייה. T. cystophora מנווטת בבתי הגידול המורכבים אופטית של המנגרובים באמצעות ניווט למרחקים ארוכים וזיהוי של עמודי אור המשמשים לשמירה על המיקום בתוך בית הגידול11,12, וכן באמצעות התנהגות של הימנעות ממכשולים כדי לנווט סביב שורשי תמיכה טבולים12,13,14. המסגרת הנוירו-אתולוגית העומדת בבסיס עבודה זו גורסת כי התנהגות היא המדד התקף היחיד לעיבוד חושי בבעלי חיים שאינם בעלי שפה. מכיוון שאיננו יכולים לשאול בעלי חיים מה הם תופסים, יש להתאים את התכנון הניסויי לגירויים שהחיה יכולה לזהות ולהבין, ולהתנהגויות שהחיה מסוגלת לבצע. מכאן נובע כי יש לנסח שאלות ניסוייות במונחיה של החיה, ולא במונחיו של החוקר. התנהגות ההימנעות ממכשולים של T. cystophora ממחישה עיקרון זה. האפידרמיס של במבה התיבה עבה רק שכבה אחת של תאים, מה שהופך התנגשות עם שורש תמיכה טבול לפוטנציאלית קטלנית בשל נזק לגופה השברירי. מכיוון שאינטגרציה בין-רופאלים מתרחשת רק במורד הזרם באמצעות עצב הטבעת15, אף מערכת עצבים רופאלית (RNS) בודדת אינה מקבלת את הקלט הבינוקולרי החופף הדרוש לחישוב עומק מתוך שונות סטריאוסקופית. במקום זאת, החיה מנצלת תכונה בסיסית של אופטיקה תת-מימית: הניגודיות בין אובייקט למים שסביבו דועכת במהירות עם הגדלת המרחק. לכן, מכשול בעל ניגודיות גבוהה הוא מכשול קרוב, כזה המהווה איום מיידי, בעוד שמכשול בעל ניגודיות נמוכה הוא רחוק ואינו מהווה איום בשלב זה. החיה משתמשת בניגודיות כסמן למרחק16. בבעלי חיים המתנהגים באופן חופשי, התנהגות הימנעות ממכשולים (OAB) מבוססת על החלטת go/no go; אירוע מופעל כאשר החיה מזהה מכשול תת-מימי שהניגודיות שלו עולה על סף מעבר ההחלטה (DTT), הסף שמעליו המכשול קרוב מספיק כדי להוות איום, ומפעילה את תגובת ה-go: 3–5 התכווצויות מהירות של הפעמון, פנייה של 120–180° ושחייה מהירה הרחק מהמכשול14 (איור 1C). תגובת קוצב לב מדורגת מעל ה-DTT משקפת את מידת הדחיפות המדורגת של האיום16. לפיכך, ה-OAB מספקת בדיקה התנהגותית נגישה מאוד לאינטגרציה סנסו-מוטורית: פרמטר חזותי יחיד ומוגדר היטב (ניגודיות) שולט בפלט מוטורי סטריאוטיפי וכמותי, מה שהופך אותה למערכת אידיאלית לחקירת הבסיס העצבי של קבלת החלטות מונחית ראייה.
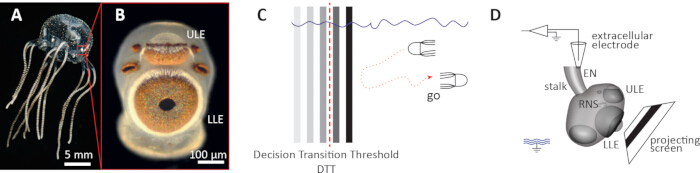
איור 1: סקירה של הכנת רופליום מבודד של Tripedalia cystophora להקלטה אלקטרופיזיולוגית חוץ-תאית. (A) מדיוזה בוגרת של T. cystophora. סרגל קנה מידה: 5 mm. המלבן האדום מציין את מיקומו של רופליום אחד בשולי המטרייה. (B) תמונת תקריב של רופליום מבודד. העדשה העליונה (ULE) והעדשה התחתונה (LLE) הן עיניים יוצרות תמונה. סרגל קנה מידה: 100 µm. תמונה על ידי Dan-Eric Nilsson, שחזור באישור. (C) איור סכימטי של התנהגות הימנעות ממכשולים (OAB). מתחת לסף מעבר ההחלטה (DTT, קו מקווקו אדום), בעל החיים ממשיך לשחות לעבר המכשול (no go). מעל ה-DTT, מופעלת התנהגות הימנעות ממכשולים (go). (D) סכימה של הכנה אלקטרופיזיולוגית של רופליום מבודד. הרופליום ממוקם מול מסך הקרנה משופע. האלקטרודה החוץ-תאית מקליטה אותות של קצב השחייה מעצב העטפת העוקץ (EN). RNS: מערכת העצבים של הרופליום; ULE: עדשה עליונה; LLE: עדשה תחתונה; EN: עצב עטפת העוקץ. סמל ההארקה מציין את אלקטרודת הייחוס של האמבטיה. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
המצע העצבי המתווך עיבוד חזותי זה הוא ה-RNS, הכולל כ-1000 נוירונים לכל rhopalium17. למרות מספר הנוירונים המוגבל, ה-RNS הוא מורכב מבחינה ארכיטקטונית. ראיות אימונוהיסטוכימיות מצביעות על כך שהוא מאורגן בצבירים נפרדים של נוירונים המבטאים פרופילים שונים של נוירופפטידים18, דבר העולה בקנה אחד עם ארכיטקטורת עיבוד מקיטוןלית. נטען כי מידע חזותי מעובד דרך צבירים תנודתיים נחותים (subOCs), שכל אחד מהם קשור לעין ספציפית ב-rhopalium, אשר מתלכדים לכדי צביר תנודתי טרמינלי (trmOC) — אשר מוצע כי הוא מקביל לאוכלוסיית תאי קוצב הקצב המייצרת את אות הפלט המוטורי השולט בהתכווצויות המטרייה3. אנו מציעים כי ה-trmOC משלב מידע חושית מעובד מה-subOCs ומייצר את אות קוצב קצב השחייה המניע את הפלט המוטורי ההתנהגותי, וכי סנכרון בין ה-subOCs לבין ה-trmOC עומד בבסיס ההמרה של קלט חזותי לפלט של בקרה התנהגותית3 (איור 2).
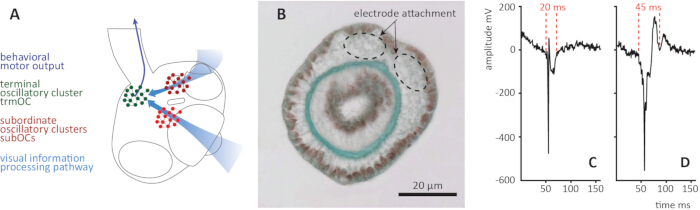
איור 2: מקור המעגל העצבי וזיהוי אלקטרופיזיולוגי של אות קצב השחייה ב- Tripedalia cystophora. (A) תרשים של מערכת העצבים הרופליאלית. מידע חזותי מעובד דרך מקבצי תנודה משניים (subOCs, באדום) הקשורים לעיניים הבודדות, ומתלכד אל מקבץ התנודה הסופי (trmOC, בירוק). מוצע כי ה-trmOC משלב מידע סנסורי מעובד מה-subOCs ומייצר את אות קצב השחייה המניע את הפלט המוטורי ההתנהגותי. חצים תכלת מציינים את נתיב עיבוד המידע החזותי; החץ הכחול כהה מציין פלט מוטורי התנהגותי. (B) מיקרוגרף TEM של פני השטח של הגבעול האפידרמלי החתוך. עיגולים מקווקוים מציינים את שתי נקודות החיבור של העצב האפידרמלי המסועף של הגבעול על פני השטח האדורליים של הגבעול, המתאימים לאתרי מיקום אלקטרודות ההקלטה. (C) אות דמוי פוטנציאל פעולה. צורת הגל מאופיינת בסטייה חדה וצרה עם משך של כ-20 ms (מסומן על ידי קווים אדומים מקווקוים). (D) אות קצב שחייה שמקורו ב-trmOC. צורת הגל רחבה יותר, עם משך אופייני של כ-45 ms (מסומן על ידי קווים אדומים מקווקוים), ומציגה מורפולוגיה מורכבת המשקפת את הפעילות המסוכמת של נוירונים מרובים ב-trmOC. למרות שאמפליטודות האותים דומות בין שני סוגי האותות, משך צורת הגל והמורפולוגיה הם הקריטריונים המבדילים המהימנים עבור ניתוח המשך. כל הערכים האלקטרופיזיולוגיים הם לאחר הגברה (×1000). שונה באישור מ-Bielecki et al.24. אנא לחצו כאן להצגת גרסה גדולה יותר של איור זה.
ארכיטקטורה זו יוצרת הזדמנות ניסיונית יוצאת דופן. אות קצב השחייה המופק על ידי ה-trmOC מניע התכווצויות של הפעמון באופן של אחד-לאחד קפדני19, וניתן להקליט אותו באופן חוץ-תאי מעצב השכבה האפידרמלית של rhopalium מבודד13,20. משמעות הדבר היא שניתן לנטר פקודות מוטוריות המעוררות חזותית, ובשלב מתקדם יותר, תגובות התנהגותיות מונחות חזותית, באמצעות שיטות אלקטרופיזיולוגיות בביצוע הכנה שבה האפקטורים המוטוריים עצמם הוסרו לחלוטין14. לפיכך, ה-rhopalium המבודד תופס מיקום מתודולוגי ביניים שקשה להשיג במערכות אחרות: הוא מציע את השליטה הניסיונית של הכנה מצומצמת, כולל הגדרה מדויקת של גירויים חזותיים מרחביים-זמניים, תוך שמירה על קריאה כמותית וישירה של פלט עצבי הרלוונטי להתנהגות. בתנאים שאינם מופרעים, אותות קצב מופיעים בתדירות של 0.5–1 Hz; תגובות הימנעות ממכשולים המעוררות חזותית מאופיינות בעליות ל-2–3 Hz, מה שמעניק חלון אות ברור לצורך ניתוח14 (איור 1D).
שילוב זה של תכונות הופך את ההכנה של ה-rhopalium המבודד מ-T. cystophora למתאימה ביותר למחקר ברמת המערכת של עיבוד חזותי ואינטגרציה סנסורית-מוטורית. הכנה זו מתאימה לחוקרים השואפים לבחון עיבוד חזותי, אינטגרציה סנסורית-מוטורית, או דינמיקה של רשתות תנודתיות במערכת עצבית ניתנת למחקר עם עיניים יוצרות תמונה והתנהגויות מונחות חזותית המאופיינות היטב4. היא דורשת ציוד אלקטרופיזיולוגי סטנדרטי, מקרן מסחרי שעבר התאמה ומיקרוסקופ לדיסקציה, וניתן להקימה במעבדה ללא תשתית ייעודית. ניתן ליישם את פאראדיגמת הלמידה המכנית-חזותית אסוציאטיבית — הצמדה אסוציאטיבית של גירוי חזותי וגירוי מכנו-סנסורי בו-זמנית — שתוארה בעבר עבור הכנה זו14, כהרחבה של פרוטוקול ההקלטה הבסיסי המתואר כאן.
פרוטוקול
לא נדרש אישור אתי לבעלי חיים עבור מחקר זה. הצנידריים (Cnidarians), כולל *Tripedalia cystophora*, אינם נכללים בהיקף של הנחיה 2010/63/EU בדבר הגנה על בעלי חיים המשמשים למטרות מדעיות, אשר חלה על רכיבוליים וחולייתנים בלבד. בעלי החיים ששימשו במחקר זה נאספו מנחלי מנגרובים סמוך ל-La Parguera, פורטו ריקו, ארה"ב, שאינה חתומה על פרוטוקול נגויה בדבר גישה למשאבים גנטיים וחלוקת רווחים; לפיכך, לא נדרשה הסכמה מדעת מראש או הסכם גישה וחלוקת רווחים. *Tripedalia cystophora* אינו רשום כמין בסכנת הכחדה או מוגן תחת CITES או תחת כל חקיקת שימור לאומית רלוונטית.
1. הגדרת הבמה ושרשרת האותות
הערה: כל רכיבי החומרה והחיבורים ביניהם מוצגים באיור 3. יש להיעזר באיור 3 לאורך חלק זה. יש להשלים את כל השלבים בחלק זה לפני הטיפול בבעל החיים. תא ההקלטה אינו מלא במי ים בשלב זה.
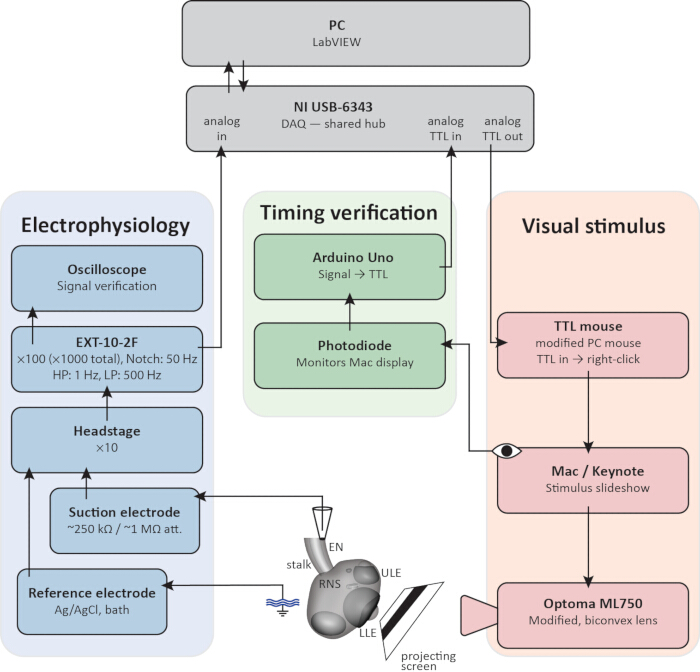
איור 3: דיאגרמת חיבורים להכנה של אלקטרופיזיולוגיה חוץ-תאית של rhopalium מבודד. המחשב המריץ את ה-VI וה-DAQ (למעלה, אפור) משמשים כמרכז אינטגרציה משותף לכל שלושת נתיבי האותות. נתיב אלקטרופיזיולוגיה (כחול): אותות קצב שחייה מוקלטים מעצב העצבי האפידרמלי (EN) באמצעות אלקטרודת יניקה (~250 kΩ קצה חופשי, ~1 MΩ מחובר) ואלקטרודת ייחוס מסוג Ag/AgCl המונחת באמבט, מוגברים על ידי headstage מדגם EXT-10-2F (פי 10) ומגבר ראשי (פי 100, סך הכל פי 1000) עם סינון bandpass (HP: 1 Hz, LP: 500 Hz) וסינון notch של 50/60 Hz, מנוטרים באוסילוסקופ ונרכשים על ידי ה-DAQ. נתיב גירוי חזותי (אדום): פולס TTL של ה-DAQ מקדם את מצגת הגירויים באמצעות עכבר מחשב שונה (TTL mouse), המפעיל את מקרן ה-DLP (שונה, עדשה קמורה-קמורה) כדי להקרין את הגירוי על קיר המסך הנטוי של תא ההקלטה מול העין עם העדשה התחתונה (LLE). נתיב אימות תזמון (ירוק): פוטודיודה מנטרת את ריבוע האינדיקציה השחור והלבן בתצוגת המחשב, שעובר מלבן לשחור עם תחילת הגירוי וחוזר ללבן בסיומו; בקר Arduino Uno ממיר אות זה לפולס TTL המוקלט על ידי ה-DAQ כחלון הגירוי המאומת. RNS: מערכת העצבים של ה-rhopalium; ULE: העין עם העדשה העליונה; LLE: העין עם העדשה התחתונה; EN: העצב האפידרמלי של הגבעול. כל ערכי האמפליטודה הם לאחר הגברה (פי 1000). אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
- בניית תא הקלטה
- תכננו או הדפיסו בתלת-ממד תא הקלטה בעל ממדים פנימיים מספיקים כדי להכיל את הדגימה, את קצה מיקרופיפטת ההחזקה ואת קצה אלקטרודת ההקלטה.
הערה: מאפייני התכנון הקריטיים מבחינה תפקודית הם מדף כיסוי הזכוכית, הממקם את ה-rhopalium בקצה כיסוי הזכוכית במרחק של 2 מ"מ ממסך ההקרנה, וממדי המסך (16 מ"מ × 12 מ"מ, בשיפוע של 60°), אשר יחד קובעים את הזווית התת-מרכזית של הגירוי הוויזואלי בעין בעדשה התחתונה. לתא המתואר כאן יש בסיס במידות של 30 מ"מ × 30 מ"מ ועובי דופן של כ-5 מ"מ. שרטוטים טכניים מופיעים ב- איור 4. - הנח את זכוכית הכיסוי של ההמוציטומטר (hemacytometer) מדגם Roth בגודל 20 מ"מ × 26 מ"מ על מדפי זכוכית הכיסוי של תא ההקלטה. זכוכית הכיסוי נשארת במקומה הודות לכוח ציפה שלילי ואינה דורשת קיבוע באמצעות דבק.
- התקן את תא ההקלטה על בסיס המיקרוסקופ באמצעות חורי המעבר M6. מומלץ להשתמש בבמה עם תנועה תרגומית בצירים x-y-z, שכן היא מקלה על כיונון עדין של התמונה המוקרנת על דופן מסך ההקרנה של תא ההקלטה.
- חברו את פתחי הכניסה והיציאה של תעלות הזרימה (flow-through channels) בתא ההקלטה (איור 4A) למקלח מים בעל בקרת טמפרטורה עם מים במחזוריות של 28 °C.
הערה: יש לשמור על טמפרטורת תא ההקלטה בטווח של 28–30 °C לאורך כל הניסוי.
- תכננו או הדפיסו בתלת-ממד תא הקלטה בעל ממדים פנימיים מספיקים כדי להכיל את הדגימה, את קצה מיקרופיפטת ההחזקה ואת קצה אלקטרודת ההקלטה.
- תצורה אופטית (איור 3, שרשרת גירויים חזותית)
אזהרה: אין להביט ישירות בפלט של המקרן, ובמיוחד לפני התקנת מסנני צפיפות ניטרלית (סעיף 4). הסרת מערכת העדשות של היצרן מבטלת את הנחתת האור המובנית ועלולה לגרום לפגיעה בעיניים.- הסר את מערכת העדשות של היצרן מהמקרן.
- התקן עדשה קמורה-קמורה אחת (f = 30 mm) לפני מפתח הפלט של המקרן כדי למקד את התמונה המוקרנת על קיר מסך ההקרנה של תא ההקלטה.
- כוון את המקרן כך שהתמונה המוקרנת תהיה ממוקדת על קיר מסך ההקרנה של תא ההקלטה ותמלא את ממדי המסך (16 מ"מ × 12 מ"מ).
הערה: בשלב זה אין להכניס מסנני צפיפות ניטרלית (Neutral density filters). עוצמת הסינון המתאימה נקבעת באופן אמפירי במהלך הכיול הביולוגי בסעיף 4.
- הרכבת שרשרת האותות (איור 3, אלקטרופיזיולוגיה ושרשראות אימות תזמון)
- חבר את מחזיק האלקטרודה לזרוע ה-headstage המסופקת עם המגבר EXT-10-2F, ואבטח את זרוע ה-headstage בתוך מיקרו-מניפולטור MM33 אחד.
- חברו את ראש המגבר (headstage) למגבר הראשי. ההגבר של ראש המגבר הוא 10×. הגדירו את ההגבר של המגבר הראשי ל-100×, מה שייתן הגברה כוללת של 1,000×.
- חבר את מוצא המגבר לערוץ קלט אנלוגי של ממיר אנלוגי-דיגיטלי (DAQ).
- חבר את ה-DAQ למחשב המפעיל את LabVIEW (גרסה 2018 או דומה) באמצעות USB.
- חבר את יציאת ה-TTL של ה-Arduino Uno לערוץ קלט אנלוגי ייעודי של ה-DAQ.
- מקמו את הפוטודיודה מעל ריבוע האינדיקטור השחור והלבן בתצוגת המחשב (שלב 1.4.2). חברו את ההדק החיובי של הפוטודיודה לפין הכניסה האנלוגי A0 של ה-Arduino Uno ואת ההדק השלילי להארקה (ground). סקיצת ה-Arduino המממשת את ניטור הפוטודיודה ואת לוגיקת סף פלט ה-TTL מסופקת כחומר נלווה (קובץ משלים 1).
- תכנון גאומטריית הגירוי (איור 3, שרשרת גירויים חזותית)
- עצב את הגירוי הוויזואלי בתוכנת המצגות כפס אפור אנכי נע על רקע לבן, המדמה מכשול של שורש תמיכה של מנגרובים. הגדר את הרקע ללבן מקסימלי.
הערה: גוון האפור של הפס ביחס לרקע הלבן קובע את ניגודיות הגירוי, והוא נקבע במהלך אפיון הקרינה (irradiance characterization) בסעיף 4. הפס צריך להתרחב כך שזווית הראייה שלו תהיה 30° של זווית הראייה של העדשה התחתונה בעין (מדידה במרכז שדה הראייה) ולהזיז ב- 10° s-1 לרוחב השדה הראייתי כולו, תוך שהמכשול נשאר בתוך השדה הראייתי בכל עת. ניתן לקבוע את הזווית הראייתית של מכשול מוקרן באופן הבא:
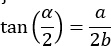
כאשר $\alpha$ היא הזווית הראייתית, $a$ הוא רוחב מאפיין התמונה, ו-$b$ הוא המרחק מהעדשה התחתונה של העין למסך. תנועת הפס מיושמת כאנימציה של אובייקט רציף בודד (למשל, אפקט ה-"Move" ב-Keynote) המיושמת על אובייקט הפס בתוך שקף אחד, ולא כרצף של שקפים נפרדים. קובץ גירוי מייצג המממש אנימציה זו מסופק כחומר נלווה (קובץ משלים 2מכיוון שרוחב הפס והמהירות מוגדרים בזווית ראייה ולא ביחידות פיזיות, יש להמיר את שניהם למילימטרים ול-mm/s באמצעות המשוואה לעיל, בהתבסס על מרחק העבודה הספציפי וממדי המסך של תא ההקלטה, לפני הזנתם כגודל האובייקט ומשך האנימציה בתוכנת המצגת. - הכלילו ריבוע אינדיקטור קטן בשחור-לבן בפינת השקף, אשר יעבור מלבן לשחור בתיאום עם תחילת תנועת הפס ויחזור ללבן בסיום הגירוי. עקבו אחר ריבוע זה על צג המחשב באמצעות הפוטודיודה כדי לאמת את תזמון הגירוי בשלב 3.3.
הערה: ריבוע הסימון בשחור ולבן מופיע בהכרח בתוך התמונה המוקרנת על מסך תא ההקלטה, שכן עליו להיות חלק מהשקופית כדי להופיע בתצוגת המחשב במהלך המצגת. עם זאת, גודל הריבוע מותאם כך שימלא רק את שטח הקליטה של הפוטודיודה בתצוגת המחשב. כאשר הוא מוקרן על מסך התא, הוא קטן מספיק כדי שלא יזוהה כמאפיין חזותי נפרד על ידי העין בעדשה התחתונה, ותרומתו לבהירות הכללית של המסך היא זניחה ואינה מעוררת תגובות של הדלקת/כיבוי אור (light ON/OFF).4,13,20. - התקדם בשקופיות של תוכנת המצגת באמצעות טריגר אוטומטי או ידני.
- אפשרות א' (אוטומטית): בנו עכבר בעל לוגיקת טרנזיסטור-טרנזיסטור (TTL) על ידי שינוי עכבר PC סטנדרטי, כך שפולס TTL קצר של 5 V המתקבל מפלט ה-DAQ יחליף את אות הלחיצה הימנית. חברו את עכבר ה-TTL למחשב ההצגה באמצעות USB. הגדירו את תוכנת ההצגה כך שתקדם שקפים בעת קלט של לחיצה ימנית.
- אפשרות ב' (ידנית): הפעלה ידנית של מעבר השקופיות בנקודת תחילת הגירוי המתוכננת. מכיוון שחלון הגירוי שאומת על ידי ה-Arduino (ערוץ 3), ולא אות ההפעלה עצמו, משמש כרישום התזמון המכריע לצורך הניתוח (שלב 6.2.1), הפעלה ידנית אינה פוגעת בדיוק התזמון, אם כי היא דורשת תזמון מדויק של המפעיל במהלך הרכישה והיא פחות נוחה מהאפשרות האוטומטית.
- עצב את הגירוי הוויזואלי בתוכנת המצגות כפס אפור אנכי נע על רקע לבן, המדמה מכשול של שורש תמיכה של מנגרובים. הגדר את הרקע ללבן מקסימלי.
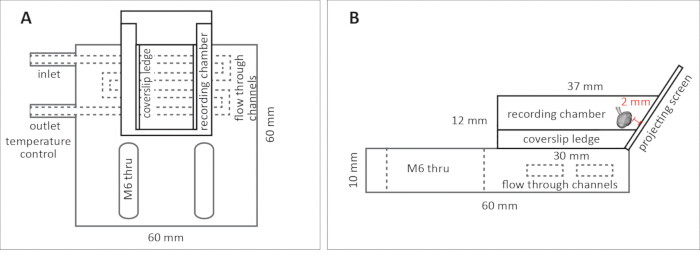
איור 4: תא הקלטה עבור תכשיר rhopalium מבודד. (A) תרשים במבט עליון. תא ההקלטה מוקף בתעלות זרימה לבקרת טמפרטורה באמצעות מעטפת מים, עם פתחי כניסה ויציאה (OD 4.2 mm, ID 2.5 mm) מסומנים. מדפי כיסוי הזכוכית רצים לאורכו של שני הקירות הפנימיים של התא, ותומכים בכיסוי הזכוכית של ההמוציטומטר בגובה מרכז התא. חורי מעבר M6 מספקים נקודות עיגון לקיבוע התא לשולחן המיקרוסקופ. מימדים כלליים: 60 mm × 60 mm. (B) תרשים במבט צד עם מימדים. לתא ההקלטה גובה פנימי של 12 mm ורוחב עליון של 37 mm. קיר אחד של התא מהווה את מסך ההקרנה, נטוי בזווית של 60° ביחס לאנך כדי להתיישב עם הציר האופטי של העדשה התחתונה. מדף כיסוי הזכוכית ממיקם את ה-rhopalium בקצה כיסוי הזכוכית הפונה למסך ההקרנה. מרחק העבודה של 2 mm המוצג משקף את התצורה הספציפית של התא, המסך והמקרן המתוארת בפרוטוקול זה; קוראים המתאימים עיצוב זה לחומרה שונה צריכים לחשב מחדש מרחק עבודה מתאים עבור המערך שלהם באמצעות המשוואה בשלב 1.4.1. תעלות זרימה לבקרת טמפרטורה רצות בבסיס תא ההקלטה ואינן באות במגע עם התכשיר. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
2. ייצור אלקטרודות
הערה: אלקטרודות יניקה חוץ-תאיות מורכבות מצינורות קפילריים מזכוכית עם קצוות מחודדים שנמשכו כדי ליצור פתח המתאים להצמדה באמצעות יניקה ולהקלטה של פוטנציאלים חשמליים. הקפילריה מזכוכית משמשת כבידוד חשמלי, מה שמבטיח שרק פוטנציאלים בקצה יוקלטו. חוט כסף המוחדר לקפילריה מחובר למגבר. תצורה זו מאפשרת הקלטות של יחידות מרובות (multi-unit recordings), הלוכדות פוטנציאלים חשמליים מקבוצות של תאי קוצב בקצה האלקטרודה, הנמדדים ביחס לאלקטרודת ייחוס המוכנסת לאמבט. יש להכין את האלקטרודות ביום השימוש, לפני סשן ההקלטה. אלקטרודות מאוחסנות נוטות לסתימה של הקצה, דבר המונע מימי ים להישאב לתוך הקפילריה והופך את האלקטרודה לבלתי פונקציונלית. לקפילריות זכוכית שנמשכו יש קצוות חדים ושבירים. יש לטפל בהן בזהירות במהלך ההכנה כדי למנוע פציעות מדקירה, ולהשליך קפילריות שבורות, פסולות או משומשות למכל ייעודי לחפצים חדים.
- משיכת צינור קפילרי מזכוכית
- הכנס צינור קפילרי מזכוכית בורוסיליקט (1.16 mm ID × 2.00 mm OD × 80 mm L) למכשיר משיכת מיקרופיפטות (micropipette puller).
- בצע את תוכנית המשיכה הבאה: שורה 1 (×1): heat 535, pull 0, velocity 12, time 200, pressure 600, ramp 540. שורות 2–4 (×3): heat 532, pull 0, velocity 12, time 100.
הערה: פרמטרים אלה ספציפיים למכשיר, לזכוכית ולפילמנט שנעשה בהם שימוש ועשויים לדרוש התאמה ביחידה שונה או לאחר בלאי של הפילמנט; יש להתייחס אליהם כנקודת התחלה ולא כמפרט קבוע. - הוצא בזהירות את האלקטרודה שנמשחה ואחסן אותה כשהקצה פונה כלפי מעלה כדי למנוע נזק מכני.
- ליטוש קצה האלקטרודה
- לטש את הקצה כדי ליצור משטח חלק בעל אטימה בוואקום, בניצב לציר הקפילרה. עיין בשתי האפשרויות המוצגות להלן; אפשרות A (microforge) מומלצת.
- אפשרות A: ליטוש באמצעות microforge (מומלץ)
- הצב את האלקטרודה שנמשחה בתוך ה-microforge.
- תחת הגדלה של 600× (עדשה אובייקטיבית 40×, עדשה אוקולרית 15×), מקם את הקצה ליד פילמנט החימום.
- חמם ולטש את הקצה עד שהפתח מראה התנגדות של כ-250 kΩ (המקבילה ל-~1 MΩ בעת מגע עם רקמה). בהגדלה של 600×, הדבר תואם לכשלוש חלוקות בסולם הרטיקל של העינית.
הערה: כדי למדוד את התנגדות האלקטרודה, חבר מולטימטר בין ליבת ה-BNC (המחוברת לחוט הכסף של האלקטרודה) לבין אלקטרודת הייחוס של האמבט (Ag/AgCl pellet), לאחר שהאלקטרודה מולאה במי ים. מדידת התנגדות חשמלית אינה נדרשת עבור רישומים סטנדרטיים של גירויים ויזואליים, שבהם איכות האות היא הקריטריון העיקרי להתאמת האלקטרודה (שלב 6.1.5); היא הופכת לנחוצה כאשר הכנה זו משמשת עבור פרדיגמת למידה אסוציאטיבית הדורשת אספקת זרם מחושבת, דבר שאינו נכלל בהיקף פרוטוקול זה14. - המתן עד שהאלקטרודה תתקרר לחלוטין לפני הוצאתה מה-microforge.
- אפשרות B: ליטוש ידני ללא microforge
זהירות: שלב זה משתמש בלהבה פתוחה (מבער אתנול). הרחק חומרים דליקים מהלהבה ופעל לפי אמצעי הזהירות הסטנדרטיים למעבדה בעבודה עם להבה פתוחה.- החזק לזמן קצר את קצה הקפילרה הנמשכת בלהבה של מבער אתנול עד שהזכוכית נמסה ואוטמת את הקצה כטיפה דקה.
- המתן עד שהקצה האטום יתקרר לחלוטין.
- הנח טיפה של מים דה-יוניים על דף נייר זכוכית עדין (grit 1200) והחזק את הקפילרה בניצב לפני השטח של הנייר.
- לטש את הקצה בתנועות סיבוביות קטנות, תוך מעבר בין כיוון השעון לנגד כיוון השעון.
- המשך בליטוש בזהירות עד שכמות קטנה של מים המכילים שאריות זכוכית zostanieשמורה לתוך הקצה על ידי פעולת קפילרה.
- חבר צינור גומי לקצה הנגדי של הקפילרה וחברו למזרק.
- הפעל יניקה עדינה כדי לשאוב מים דה-יוניים דרך הקצה, ובכך לשטוף את שאריות הזכוכית.
- אם השאריות אינן נשטפות, לטש בעדינות למשך זמן קצר נוסף וחזור על שלב השטיפה.
הערה: קצב הזרימה המטרה דרך הקצה המוכן הוא כ-1 cm של עמוד מים לכל 10 s תחת יניקה עדינה. הצלחת ייצור הקצה מוגדרת על ידי תוצאת הרישום (אות בעל רעש נמוך ואמפליטודה גבוהה), ולא על פי מראה הקצה. כ-40%–50% מהאלקטרודות שיוצרו בכל אחת מאפשרויות הליטוש מניבות רישומים כאלה, אם כי הגורם המגביל שונה ביניהן. בליטוש ב-microforge (אפשרות A), כישלון נובע לרוב מגאומטריית נקב לא אחידה שנוצרה במהלך שלב המשיכה (שלב 2.1), ושליטוש חימום עוקב אינו יכול לתקן זאת במלואו. בליטוש ידני (אפשרות B), ההצלחה תלויה בעיקר במיומנות המפעיל; הכישלון הנפוץ ביותר הוא נקב גדול מדי עקב ליטוש יתר. נקב עגול, חלק ובגודל נכון מגדיל משמעותית את ההסתברות לרישום באיכות גבוהה, אך אינו מבטיח זאת — התוצאה התפקודית היא הקריטריון היחיד שבאמת חשוב.
- הרכבת האלקטרודה
- הכנס את צינור הקפילרה המלוטש למחזיק האלקטרודה, תוך וידוא שחוט ה-Ag/AgCl (כסף/כסוף כלוריד) מתוח וללא קפלים בתוך הקפילרה מזכוכית, והצמדו לזרוע ה-headstage המסופקת עם המגבר EXT-10-2F. חבּר את זרוע ה-headstage למיקרומניפולטור MM33.
הערה: אם חוט הכסף אינו כלורי, בצע לו כלוריזציה אלקטרוכימית על ידי טבילה של חוט הכסף של האלקטרודה ושל אלקטרודת כסף מוצקה נפרדת בתמיסת KCl 2 M, כאשר שניהם מחוברים באמצעות מוליכים מבודדים למקור DC של 12 V. החל את הזרם במרווחי זמן של כ-2 דקות, תוך בדיקה ויזואלית של החוט בין הסבבים; החוט נחשב לכלורי מספיק ברגע שהוא התכהה באופן נראה לעין, בדרך כלל תוך 5 min בסך הכל. שטוף היטב במים דה-יוניים לאחר הכלוריזציה. חוט שאינו כלורי עלול להכניס היסט (offset) DC גדול ולא יציב.
זהירות: כלוריזציה אלקטרוליטית בתמיסת KCl מייצרת גז כלור ומימן. בצע את הפעולה באזור מאוורר. השלֵך את תמיסת הכלוריזציה KCl המשומשת בהתאם להנחיות המוסדיות לפסולת מסוכנת. - מלא את האלקטרודה מיד לפני הרישום על ידי שאיבת מי ים ישירות מתא הרישום המלא אל תוך הקפילרה, עד שהתמיסה הפנימית מגיעה למחצית גובהו של חוט הכסף. ראה שלב 3.1 להליך המילוי.
הערה: מיקרופיפטות אחזקה (holding micropipettes) אינן דורשות את המפרטים האופטיים או החשמליים של אלקטרודות רישום. אלקטרודות שנדחו במהלך הייצור (שלב 2.2) עקב קוטר קצה מוגבר (התנגדות נמוכה מ-250 kΩ) או גאומטריית קצה לא מרכזית מתאימות למטרה זו ויש לשמור אותן. אין צורך בייצור מיקרופיפטות אחזקה ייעודיות.
- הכנס את צינור הקפילרה המלוטש למחזיק האלקטרודה, תוך וידוא שחוט ה-Ag/AgCl (כסף/כסוף כלוריד) מתוח וללא קפלים בתוך הקפילרה מזכוכית, והצמדו לזרוע ה-headstage המסופקת עם המגבר EXT-10-2F. חבּר את זרוע ה-headstage למיקרומניפולטור MM33.
3. תיקוף המערכת
חלק זה מוודא שמערכת ההקלטה המלאה — האלקטרודה, שרשרת האותות, אספקת הגירויים ואימות התזמון — פועלת כראוי לפני הכנסת הדגימה הניסויית. שרשרת האותות המלאה מומחשת באיור 3. ודאו שכל החיבורים תקינים לפני ההמשך.
- מילוי התא והכנת האלקטרודות
- מלאו את תא ההקלטה במי ים מסוננים ב-0.20 µm ממיכל הגידול. פעולה זו מבטיחה רציפות בהרכב הכימי בין סביבת הגידול לתא ההקלטה, ובכך מונעת חשיפה של ה-rhopalium לתרכובות זרות או לשינויים בכימיה של המים שעלולים להשפיע על פעילות קוצב הפעימות או על חיוניות הדגימה.
- מלאו את אלקטרודת היניקה להקלטה על ידי שאיבת מי ים ישירות מתא ההקלטה אל תוך הנימיות, עד שהתמיסה הפנימית מגיעה למחצית מגובה חוט הכסף. מלאו את המיקרופיפט להחזקה בכמות מספקת של מי ים מתא ההקלטה כדי לאפשר הידבקות ביניקה לגביש.
- הניחו אלקטרודת pellet סינטרית מסוג Ag/AgCl (כסף/כלוריד כסף) באמבט ההקלטה וחברו אותה לכניסת הייחוס (reference input) של ה-headstage.
- הארקה ובדיקת רעשים
זהירות: מערך זה מפעיל ציוד חשמלי בקרבה מיידית למי ים. הרחיקו את כל החיבורים והציוד החשמלי מהתא ומכל נזילה, ופעלו לפי נהלי הבטיחות החשמליים המוסדיים לעבודה בסביבה רטובה.- הארקו את כל המכשירים לנקודת הארקה משותפת אחת (תצורת star grounding) כדי למנוע לולאות הארקה.
- נטרו את האות באוסצילוסקופ. ודאו שקו הבסיס נקי וללא רעשים לפני ההמשך.
הערה: במעבדה שלנו בדרך כלל לא נעשה שימוש בכלובים פאראדאי להקלטות חוץ-תאיות, כיוון שהארקה קפדנית מסוג star grounding מוכיחה באופן עקבי יעילות רבה יותר בהסרת רעשים חשמליים (50/60 Hz) מאשר מיגון פיזי.
- שרשרת אימות תזמון
- הפעילו את המכשיר הווירטואלי (VI) של LabVIEW (סופק כחומר נלווה, Supplementary File 3). הפעילו את ה-VI במהלך תיקוף המערכת. פעולה זו שולחת פולס TTL לעכבר ה-TTL כדי להפעיל את בניית הגירוי, ומייצרת קובץ פלט בפורמט .txt המאפשר אימות שכל הערוצים — אות אלקטרופיזיולוגי, LabVIEW TTL ו-Arduino TTL — נרכשים כהלכה לפני הכנסת הדגימה הניסויית.
הערה: ההשהיה בין פקודת ה-TTL שתועדה ב-LabVIEW לבין תחילת הגירוי שאומתה על ידי ה-Arduino משתנה באופן בלתי צפוי בין הקלטות ואינה נפתרת בשלב זה; במקום זאת, היא נקבעת ומתוקנת באופן פרטני בכל הקלטה במהלך הניתוח (שלב 7.2.1). - אמתו שפולס ה-TTL מה-DAQ מפעיל כראוי את בניית הגירוי ושהגירוי הוויזואלי מועבר למסך ההקרנה כפי שתוכנן.
- אמתו שה-Arduino Uno מזהה את השינוי בריבוע האינדיקטור השחור והלבן על תצוגת המחשב ומוציא פולס TTL ל-DAQ.
הערה: ה-Arduino Uno דוגם את מתח הפוטודיודה באמצעות analogRead(A0). כאשר הערך הנדגם יורד מתחת לסף שנקבע אמפירית (61 מתוך טווח ה-analogRead של 0–1023 במערך זה), פין פלט דיגיטלי 5 מוגדר ל-5 V (TTL high); כאשר הערך חוזר להיות מעל הסף, הפלט חוזר ל-0 V. סף זה תלוי במערך ויש להגדירו מחדש עבור כל מסך ותצורת תאורה סביבתית. - אשרו ש-TTL של חלון הגירוי מה-Arduino Uno נרשם כהלכה בקובץ ה-.txt שנוצר על ידי ה-LabVIEW VI, לצד הערוץ האלקטרופיזיולוגי וערוץ ה-TTL הדיגיטלי של ה-VI.
הערה: אות הפוטודיודה אינו נרשם ישירות על ידי ה-DAQ, כיוון שפלט הפוטודיודה הגולמי רועש מדי לזיהוי גירוי אמין בכניסת ה-DAQ. המרה לפולס TTL נקי על ידי ה-Arduino Uno מבטיחה אות תזמון אמין ודל רעשים. סקיצת ה-Arduino המממשת את ניטור הפוטודיודה ופלט ה-TTL מסופקת כחומר נלווה (Supplementary File 1). קצב הרענון של ה-Arduino ב-1 kHz תואם לקצב הדגימה של ה-DAQ, מה שמבטיח ששום מידע על תזמון לא יאבד. - לאחר שכל הערוצים אומתו, רוקנו את תא ההקלטה והוציאו את האלקטרודה מהתא כהכנה לסעיף 4.
- הפעילו את המכשיר הווירטואלי (VI) של LabVIEW (סופק כחומר נלווה, Supplementary File 3). הפעילו את ה-VI במהלך תיקוף המערכת. פעולה זו שולחת פולס TTL לעכבר ה-TTL כדי להפעיל את בניית הגירוי, ומייצרת קובץ פלט בפורמט .txt המאפשר אימות שכל הערוצים — אות אלקטרופיזיולוגי, LabVIEW TTL ו-Arduino TTL — נרכשים כהלכה לפני הכנסת הדגימה הניסויית.
4. כיול תאורה וקביעת ניגודיות
הערה: סעיף זה קובע את התצורה האופטית הנכונה לע극שה ויזואלית של העין בעדשה התחתונה וקובע את ערכי הקרינה (irradiance) הנדרשים לחישובים של ניגודיות. לצורך שלב הכיול הביולוגי נעשה שימוש ברופליום (rhopalium) המיועד להקרבה. אפיון הקרינה מבוצע ללא כל הכנה בתא. סעיף זה גוזל זמן רב. הכיול הביולוגי, אפיון הקרינה בכל רמות האפור וחישובים של ניגודיות עשויים לדרוש מפגש ייעודי לפני יום ההקלטה. את הרופליום ששימש לכיול הביולוגי יש להשליך לאחר סעיף זה ולא ניתן להשתמש בו להקלטות.
- כיול ביולוגי
- מלאו את תא ההקלטה במי ים מסוננים ב-0.20 µm ממיכל התרבית.
- בודדו rhopalium והעבירו אותו לתא ההקלטה לפי הפרוצדורה המתוארת בסעיף 5.
- מקמו את ה-rhopalium על קצה לוכסנית הכיסוי הפונה למס ההקרנה באמצעות מיקרופיפטת ההחזקה (איור 1D).
הערה: מיקום ה-rhopalium על קצה לוכסנית הכיסוי במקום על פני השטח שלה משרת שתי מטרות: ראשית, ניתן למקם את קצה לוכסנית הכיסוי במרחק קבוע וניתן לשחזור ממס ההקרנה, מה שמבטיח מרחק עבודה עקבי בכל ההקלטות; שנית, העין בעדשה התחתונה אינה נדרשת להסתכל דרך לוכסנית הכיסוי מזכוכית כדי לראות את המס, ובכך נמנעת עיוות זוויתי של הגירוי החזותי. המרחק מקצה לוכסנית הכיסוי למס ההקרנה קובע את התת-זווית של כל הגירויים המוקרנים עבור העין בעדשה התחתונה ויש לשמרו קבוע בכל ההקלטות. בתא המתואר בפרוטוקול זה, מרחק זה הוא 2 mm. - חברו את אלקטרודת ההקלטה לעצב הנירונים האפידרמלי לפי הפרוצדורה המתוארת בשלב 6.1.
- הציגו מכשול בניגודיות מקסימלית (c ≈ 1.0, פס שחור על רקע לבן) הנע לאורך כל רוחב השדה החזותי והעריכו את התגובה של אות קוצב הפעימות (איור 1C; איור 5).
הערה: מדידה פוטומטרית אישרה ניגודיות מקסימלית שניתן להשיג של c ≈ 0.99 בין רמות האפור הבהירות והכהות ביותר של מערכת ההקרנה שבה נעשה שימוש, מה שמשקף לומיננסה שיורית בנקודת השחור של המקרן ולא מגבלה בתכנון הגירוי; זהו הבסיס לסימון המקורב (c ≈ 1.0) המשמש לאורך פרוטוקול זה עבור גירויים בניגודיות מקסימלית.
הערה: (קריטי) תגובה מספקת מורכבת מעלייה חסונה בתדירות אות קוצב הפעימות מעל 2 Hz, המתרחשת כפרץ קצר וסנכרוני בזמן כשהקצה המוביל של המכשול מגיע למרכז השדה החזותי, ולא כתגובה מתמשכת לאורך כל הצגת הגירוי, עם כ-5–15 אותות קוצב פעימות המתרחשים במהלך פרץ זה (איור 5B). עוצמת התגובה, הן בתדירות והן במספר האותות, גוברת עם ניגודיות הגירוי; לכן, התגובה לגירוי בניגודיות מקסימלית (c ≈ 1.0) צריכה להיות חזקה ככל האפשר, שכן הדבר משקף אוריינטציה נכונה של ה-LLE, חיבור תקין של האלקטרודה וכיול תקין של המקרן, ומבטיח טווח דינמי מספיק להבחנה בין תגובות ברמות ניגודיות נמוכות יותר. הדבר מאשר שהפוטורצפטורים פועלים בתוך הטווח הדינמי שלהם ואינם רוויים על ידי קרינה מוגברת. אם לא נצפתה מודולציה בתדירות קוצב הפעימות למרות הכנה בריאה המראה פעילות ספונטנית של קוצב הפעימות ב-0.5–1 Hz, יש לחשוד ברוויה של הפוטורצפטורים עקב קרינה מוגברת. הכניסו מסנן צפיפות ניטרלית (למשל, Thorlabs NE01A, צפיפות אופטית = 0.1, לפי הצורך) למערכת העדשות וחזרו על הכיול. הגבירו את הנחתית בשלבים עד לקבלת תגובת תדירות חסונה של קוצב הפעימות. את כל ההקלטות הבאות יש לבצע עם תצורת מסנן זו במקומה. - ברגע שהושגה תגובה ביולוגית מספקת, רשמו את תצורת מסנן הצפיפות הניטרלית. תצורה זו קבועה עבור כל ההקלטות הבאות עם מערך אופטי זה.
- הוציאו את ה-rhopalium מתא ההקלטה והשליכו אותו. לא ניתן להשתמש ב-rhopalium ששימש לכיול ביולוגי לצורך הקלטות בשל הזמן שחלף במהלך הליך הכיול.
- אפיון קרינה (Irradiance)
- רוקנו את תא ההקלטה וודאו שפני השטח של מס ההקרנה יבשים. מקמו את סיב הספקטרומטר ישירות על פני השטח של מס ההקרנה ובניצב להם.
הערה: רוב הסיבים האופטיים של ספקטרומטרים אינם עמידים במים. התא חייב להיות ריק ופני השטח של המס יבשים לפני הנחת הסיב על המס. - בעזרת תוכנת ההצגה, האירו באופן אחיד את מס ההקרנה בכל רמה של אפור שיש למדוד ורשמו את הקרינה (350–700 nm) באמצעות הספקטרומטר.
הערה: מומלץ לעבוד מרמת האפור המקסימלית למינימלית (לבן לשחור), שכן הספקטרומטר נוטה יותר לחשיפת יתר ברמות קרינה גבוהות. ייתכן שיהיה צורך בכיול מחדש של זמן האינטגרציה בנקודות שונות בטווח רמות האפור כדי למנוע הן חשיפת יתר והן חשיפה חסרה. תהליך זה על פני כל רמות האפור גוזל זמן ויש לתכנן אותו בהתאם. - תקנו כל ערך קרינה שנמדד לפי ספקטרום הבליעה של האופסין 500 nm של T. cystophora הנמצא בעין בעדשה התחתונה21,22.
הערה: תיקון האופסין מבוצע על ידי הכפלת הקרינה שנמדדה בכל אורך גל במקדם הקבלה המתאים מתוך תבנית הפיגמנט החזותי של Govardovskii עבור λmax של 500 nm21, ולאחר מכן סיכום על פני טווח אורכי הגל שנמדדו כדי לקבל ערך קרינה יחיד מתוקן-אופסין. חישוב זה יכול להתבצע בכל תוכנת גיליון נתונים סטנדרטית לאחר רכישת נתוני קרינה ספקטרליים גולמיים. - חשבו את הניגודיות של כל רמת אפור באמצעות ערכי הקרינה המתוקנים:

כאשר Iw היא הקרינה המתוקנת-אופסין של הרקע הלבן ו-Ig היא הקרינה המתוקנת-אופסין של הפס האפור או השחור. ערכי הניגודיות נעים בין 0 (פס שאינו ניתן להבחנה מהרקע) ל-1 (ניגודיות מקסימלית, פס שחור על רקע לבן). - מתוך ערכי הניגודיות שחושבו, זהו את רמות האפור המתאימות לרמות הניגודיות הנדרשות עבור הפרוטוקול הניסויי. עדכנו את מצגת תוכנת ההצגה עם רמות אפור אלו.
הערה: ניגודיות היא יחס בין ערכי קרינה ולכן אינה רגישה לשינויים אחידים בתפוקת המנורה המוחלטת בכל רמות האפור. אין צורך לחזור על אפיון הקרינה בין מפגשי הקלטה, בתנאי שהתצורה האופטית נותרה ללא שינוי. עם זאת, למשתמשים מומלץ לוודא את יציבות הקרינה אם נצפו שינויים בלתי צפויים בתגובה לגירוי בין מפגשים.
- רוקנו את תא ההקלטה וודאו שפני השטח של מס ההקרנה יבשים. מקמו את סיב הספקטרומטר ישירות על פני השטח של מס ההקרנה ובניצב להם.
<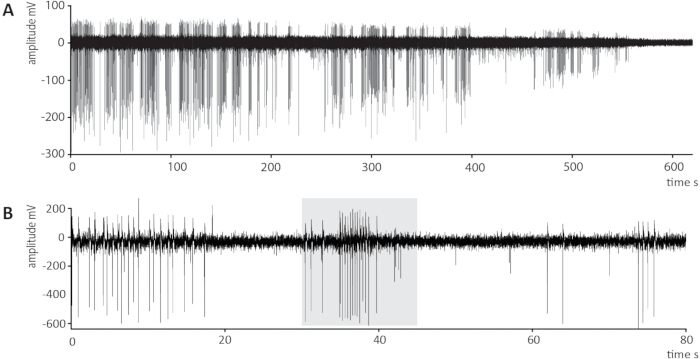
איור 5: דגימות מייצגות של רישומים חוץ-תאיים של אותות קוצב שחייה מהרופליום המבודד של Tripedalia cystophora. (A) דוגמה לאובדן הדרגתי של אטום האלקטרודה במהלך סשן הקלטה ממושך. אמפליטודת אות הקוצב מתחילה לרדת בערך ב-200–250 s, מה שמשקף התדרדרות במגע החשמלי בין קצה האלקטרודה לעצב הגבעול האפידרמלי, והאות אובד לחלוטין בערך ב-580–600 s. הן אמפליטודת האות והן רעש הרקע פוחתים במקביל, שזהו סימן ההיכר המאפיין אובדן אטום. (B) רישום מייצג של תגובת הימנעות ממכשול שעוררה גירוי חזותי מעל ה-DTT. האזור המוצל באפור מציין את חלון הגירוי, המוגדר על ידי אות Arduino TTL, במהלכו הוזז מכשול של פס אנכי בניגודיות גבוהה (c = 0.80) לרוחב השטח המלא של שדה הראייה של העין בעדשה התחתונה. תדר אות הקוצב עולה באופן ניכר במהלך חלון הגירוי, באופן העולה בקנה אחד עם תגובת הימנעות ממכשול שעוררה חזותית, וחוזר לעבר תדר הבסיס לאחר הפסקת הגירוי. אותות קוצב ספונטניים המתרחשים מחוץ לחלון הגירוי הם צפויים ואינם מהווים תגובות שעוררו חזותית. שימו לב שההבדל בסקלת ציר y בין הפנלים משקף את איכויות ההקלטה השונות המוצגות ואינו מרמז על הבדל בעוצמת האות; באלקטרופיזיולוגיה חוץ-תאית, אמפליטודת האות תלויה באיכות אטום האלקטרודה ולא בגודל התגובה הפיזיולוגית. כל הערכים הם לאחר הגברה (×1000). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
5. בידוד והעברה של Rhopalium
הערה: פרוצדורה זו מבוצעת בכל פעם שנדרש rhopalium: פעם אחת עם rhopalium להקרבה עבור הכיול הביולוגי בסעיף 4, ולאחר מכן עבור כל rhopalium ניסויי המשמש בסעיף 6. בכל מקרה, יש להרכיב את כל החומרה במלואה ולאמת אותה לפני הטיפול בבעל החיים. מספר ה-rhopalia הניסויים נקבע על פי מערך הניסוי.
- באמצעות פיפטת העברה מפלסטיק חד-פעמית שקצהה נגזר כדי ליצור פתח בקוטר של כ-8 mm, העבירו בעל חיים בודד ממיכל הגידול לצלוחית פטרי בנפח 35 mm המכילה מי ים מסוננים ב-0.20 µm ממיכל הגידול.
- הסירו את עודפי מי הים עד שהבעל חיים נשטח כנגד הצלוחית ואינו נייד, אך ללא התייבשות.
- באמצעות מספריים עדינים (מספריי Vannas, להב של 0.025 mm × 0.015 mm), חתכו את הגבעול המחבר את ה-rhopalium למטרייה בערך בשני שלישים מגובה הגבעול כפי שנמדד מנקודת החיבור של ה-rhopalium (כלומר, דיסטלית ל-rhopalium). מיד לאחר החיתוך, מלאו מחדש את צלוחית הפטרי במי ים מסוננים ב-0.20 µm ממיכל הגידול.
זהירות: מספריי Vannas הם חדים ביותר. טיפלו בהם בזהירות במהלך הניתוח כדי למנוע פציעות.
הערה: ה-rhopalium עלול לסגת אל תוך הגומחה של ה-rhopalium לאחר החיתוך. מילוי מחדש של צלוחית הפטרי במי ים מסוננים ישחרר, ברוב המקרים, את ה-rhopalium. אם לא, השתמשו בפיפטת פסטור כדי לשטוף אותו בעדינות החוצה.
באמצעות פיפטת פסטור (150 mm), העבירו את ה-rhopalium המבודד לתא ההקלטה האלקטרופיזיולוגית הממוקם על במה המיקרוסקופ. (קריטי) ודאו שה-rhopalium נשאר טבול במי ים בכל עת במהלך ואחרי ההעברה. חשיפה לאוויר תגרום לנזק בלתי הפיך לדגימה. - באמצעות פיפטת העברה, החזירו את בעל החיים למיכל הגידול.
הערה: אובדן של rhopalium בודד אינו פוגע באופן משמעותי בהתנהגות רגילה של מדוזת קופסה; בעלי חיים השומרים על rhopalium אחד בלבד ממשיכים להפגין התנהגויות רגילות של האכלה ואינטראקציה עם קרני אור. בנוסף, rhopalia מתחדשים לתפקוד מלא, כולל השבת סיגנל קצב הלב (pacemaker) ותגובות פוטורצפטור רגילות, בתוך שבועיים מההסרה23. ניתן להשתמש בבעל החיים שוב במפגשים עוקבים עד שלא יישארו rhopalia. לאחר שכל ארבעת ה-rhopalia הוסרו, בעל החיים אינו מסוגל עוד לייצר סיגנלי קצב שחייה או התכווצויות של המטרייה, ומוסר באופן הומני באמצעות פינוי סטנדרטי לכיור המעבדה, בהתאם לפינוי רקמת rhopalium (שלב 6.2.5).
6. הקלטה
- מיקום ה-Rhopalium וחיבור האלקטרודה
- מלאו את אלקטרודת היניקה להקלטה על ידי שאיבת מי שמע ישירות מתא ההקלטה אל תוך הקפילרית, עד שהתמיסה הפנימית מגיעה למחצית מגובה תיל הכסף. מלאו את מיקרופיפטת ההחזקה בכמות מספקת של מי שמע מתא ההקלטה כדי לאפשר הידבקות באמצעות יניקה לגביש.
- הניחו את מיקרופיפטת ההחזקה במיקרו-מניפולטור. חברו את קצה מיקרופיפטת ההחזקה לגביש סידן סולפט (CaSO₄) בקצה הדיסטלי של ה-rhopalium על ידי הפעלת יניקה עדינה באמצעות מזרק Luer-lock מחובר. הגביש מספק נקודת עיגון מכנית חזקה מבלי לפגוע ברקמה העצבית.
- באמצעות מיקרופיפטת ההחזקה, מקמו את ה-rhopalium על קצה כיסוי הזכוכית (coverslip) הפונה למס ההקרנה (איור 1D).
הערה: (קריטי) יש למדוד ולהקליט את המרחק בין העין של העדשה התחתונה למס ההקרנה, שכן הוא נדרש לחישוב הזווית הנתפסת (זווית הקבלה) של מאפייני התמונה המוקרנת בעין של העדשה התחתונה באמצעות:
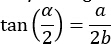
כאשר α היא הזווית החזותית, a הוא רוחב מאפיין התמונה, ו-b הוא המרחק מהעין של העדשה התחתונה למס. במרחק עבודה של 2 mm, תמונה מוקרנת של 16 mm × 12 mm (רוחב × גובה) תופסת בערך 150° אופקית ו-120° אנכית מתוך השדה החזותי המעגלי של 170° של העין של העדשה התחתונה. יש לשמור על מרחק עבודה קבוע בכל ההקלטות, שכן כל סטייה מבטלת את החישובים הזוויתיים עבור הגירויים המוצגים ומונעת השוואה ישירה בין הקלטות. - תוך שמירה על מיקום ה-rhopalium עם מיקרופיפטת ההחזקה, קידמו את אלקטרודת ההקלטה לעבר המשטח החתוך של הגבעול באמצעות מיקרו-מניפולטור שני.
הערה: עצב הגבעול האפידרמלי רץ לאורכו של הגבעול כולו, מנקודת החיבור של ה-rhopalium ועד לעצב הטבעת15. על המשטח החתוך, קצות העצבים של עצב הגבעול האפידרמלי הפיסוקי חשופים וזמינים למגע עם האלקטרודה על המשטח האדורלי של הגבעול — הצד הפונה לעיני העדשה (איור 2B). - הפעילו יניקה עדינה באמצעות מזרק Luer-lock עד להשגת אות יציב.
הערה: קצות העצבים לא תמיד ניתנים להבחנה חזותית על המשטח החתוך. מקמו את קצה האלקטרודה מעל האזור שבו צפוי להימצא עצב הגבעול האפידרמלי על סמך סימנים אנטומיים והפעילו יניקה עדינה. חיבור תקין של האלקטרודה יתבטא בהופעת אותות קצב (pacemaker signals) גדולים וברורים עם צורת גל עקבית בתדר הצפוי של 0.5–1 Hz (איור 5). אותות קצב נבדלים מאותים דמויי פוטנציאל פעולה על בסיס משך צורת הגל והמורפולוגיה שלה (איור 2C,D)13,20,24. הופעת אותות קצב יציבים היא הקריטריון המכריע למיקום נכון של האלקטרודה, ולא אישור חזותי של מגע עם העצב. אם לא התקבל אות, שחררו את היניקה, מקמו מחדש את קצה האלקטרודה מעט על המשטח החתוך, ונסו שוב. יניקה מוגברת עלולה לגרום לחסימת הקצה בשאריות רקמה או לפגיעה מכנית בקצה העצב. אובדן הדרגתי של אמפליטודת האות ורעש רקע במהלך ההקלטה מעידים על אובדן האיטום של האלקטרודה (איור 5A). - אפשרו לדגימה להסתגל למשך 10 min לפחות לאחר חיבור האלקטרודה ולפני תחילת ההקלטות. במהלך תקופה זו, השאירו את מס ההקרנה מואר עם רקע לבן ואת הפס האפור במצב סטטי בצד אחד של השדה החזותי, מחוץ למרכז.
הערה: לפני תחילת ההסתגלות, ודאו את תגובתיות הדגימה על ידי הצגת גירוי בודד בניגודיות מקסימלית (c ≈ 1.0); rhopalia שאינם מגיבים יוצאים מהמאגר של הנתונים. תקופת ההסתגלות מאפשרת לדגימה להתייצב לאחר ההפרעה המכנית של חיבור האלקטרודה. שמירה על מס לבן עם פס סטטי מבטיחה שהפטורצפטורים יאגישו לאור בתנאי הבסיס שיהיו במהלך הגירוי החזותי, ושתדר הבסיס הראשוני של הקצב יהיה יציב לפני הצגת הגירוי הראשון. זהו יתרון מעשי נוסף של שימוש בתוכנת הצגה לשליטה בגירויים. תוכן המס במהלך ההסתגלות ובין ההקלטות גלוי באופן ישיר ונשלט באופן מלא ללא צורך בתכנות נוסף. - ברגע שנוצר אות קצב יציב, הגדירו באופן אופטימלי את הגדרות מסנן הפס (bandpass filter) במגבר החוץ-תאי כדי למקסם את יחס אות לרעש ולשמור על אמפליטודת האות ומורפולוגיית צורת הגל, תוך ניטור ההשפעה על תצוגת האוסצילוסקופ. השתמשו בהגדרות התחלה הבאות: highpass 1 Hz ו-lowpass 500 Hz; הפעילו את מסנן ה-notch של 50/60 Hz (תוסף מובנה EXT-10-2F). התאימו לפי הצורך על סמך האות הנצפה.
הערה: העלאת נקודת החיתוך של ה-highpass מעל 1 Hz תחליש בהדרגה את רכיבי התדר הנמוך של אות הקצב, תפחית את האמפליטודה שלו ועלולה לפגוע בזיהוי האות. אמפליטודת האות המקויימת לאחר הגברה עבור אותות קצב נקיים וניתנים לזיהוי בקלות היא 400–600 mV, עם מקסימום של כ-1 V.
- רכישת נתונים
- הגדירו את ה-VI (המסופק כחומר משלים, Supplementary File 3) לרכישת הערוצים הבאים בו-זמנית באמצעות ה-DAQ בקצב דגימה של 1 kHz:
ערוץ 1: אות אלקטרופיזיולוגי (אות קצב מוגבר ומסונן מ-EXT-10-2F)
ערוץ 2: פלט TTL אנלוגי שנוצר ב-LabVIEW לעכבר ה-TTL)
ערוץ 3: חותמת זמן TTL אנלוגית של Arduino Uno (מתעדת את חלון הגירוי המאומת — התחלה מוגדרת על ידי מעבר ה-TTL למצב גבוה, סיום מוגדר על ידי חזרת ה-TTL למצב נמוך — כפי שזוהה על ידי הפוטודיודה המנטרת את ריבוע האינדיקציה השחור והלבן על תצוגת המחשב).
הערה: ערוץ 2 מתעד את זמן אספקת הגירוי המתוכנן, וערוץ 3 מתעד את חלון הגירוי הממשי המאומת. יש להשתמש בערוץ 3 כרישום תזמון הגירוי המכריע לכל האנליזות. - קבעו את משך ההקלטה בהתאם לפרוטוקול הניסוי. עבור רצף הצגת גירויים סטנדרטי המורכב מ-30 s של בסיס לפני גירוי, כ-15 s של גירוי חזותי, ו-35 s של תקופה לאחר גירוי, קבעו את סך משך ההקלטה ל-80 s.
הערה: פרוטוקול זה משתמש בדרך כלל ב-10 חזרות ביולוגיות (rhopalia), רצוי שיושגו מ-10 חיות שונות, כדי להעריך את עוצמת התגובה, בהתאם ל-Bielecki et al. (2023)14. בתוך דגימה בודדת, אותו rhopalium מבודד מקבל את כל פרוטוקול הגירויים החזותיים, המוצגים ברצף מהניגודיות הנמוכה ביותר לגבוהה ביותר; סדר זה מונע מהחיה להתרגל להיעדר תוצאה מרתיעה בניגודיות גבוהה, מה שעלול להפחית את התגובתיות לגירויים בניגודיות נמוכה יותר שיוצגו לאחר מכן. הקלטות עוקבות מופעלות במרווחי זמן קבועים של 2 min, מה שיוצר מרווח של 105 s בין סוף תקופת גירוי אחת לתחילת הבאה (מספיק כדי שתדר הקצב יחזור לבסיס לפני הגירוי הבא). לא מבוצעות חזרות טכניות; כל rhopalium מקבל הצגה אחת לכל רמת ניגודיות בתוך רצף הגירויים שלו. - ה-LabVIEW VI (המסופק כחומר משלים, Supplementary File 3) מוציא באופן אוטומטי פולס TTL מה-DAQ לעכבר ה-TTL בנקודת הזמן המתאימה ברצף ההקלטה, מקדם את השקופית ומתחיל את הגירוי החזותי. שמרו את הנתונים שנרכשו כקובץ .txt מופרד בטאבים. בעת שימוש ב-VI המסופק, מטא-נתוני ההקלטה מקודדים ידנית בשם הקובץ בעת השמירה.
הערה: המשתמשים מוזמנים לקבוע מוסכמת שמיות עקבית לקבצים לפני תחילת ההקלטות. מזהה דגימה הוא קוד ייחודי (למשל, מספר חיה או מספר סשן) המאפשר להתחקות אחר הקלטה נתונה עד ל-rhopalium הספציפי והסשן הניסויי ממנו מקורה. סכמת השמיות המדויקת נשאירה להעדפת החוקר, ובלבד שהיא שיטתית ומאפשרת התחקות חד-משמעית של כל הקלטה לדגימה התואמת לה — לדוגמה, שם קובץ עשוי לשלב את תאריך ושעת ההקלטה עם פרמטרי הגירוי הרלוונטיים (למשל, רמת ניגודיות, מימדי הפס ומהירות). - לאחר השלמת כל ההקלטות עבור rhopalium נתון, השליכו את רקמת ה-rhopalium דרך כיור מעבדה סטנדרטי.
הערה: המשתמשים מוזמנים לקבוע מוסכמת שמיות עקבית לקבצים לפני תחילת ההקלטות. שם קובץ שיטתי הכולל תאריך, מזהה דגימה ותנאי גירוי מספיק לאנליזה בהמשך. תוכנת הצגה מועדפת על פני גירויים חזותיים שנוצרו ב-LabVIEW משתי סיבות מעשיות: ראשית, היא מבטיחה שהתמונה המוקרנת על העין של העדשה התחתונה בין ההקלטות ידועה ונשלטת בכל עת, ובכך מונעת גירוי חזותי לא מכוון מממשקי תוכנה או ממסכי מערכת; שנית, היא מבטלת את הסיכון להשחרה של המס בין סשני הקלטה, מה שיגרום לתגובת light-OFF בפטורצפטורים ויכניס פעילות קצב מזויפת לתקופת הבסיס הבאה. הגודל הזוויתי והמהירות הנתפסים של הפס ישתנו באופן לא ליניארי לאורך השדה החזותי בשל הגיאומטריה של העין של העדשה. אי-ליניאריות זו אינה מתוקנת משתי סיבות: ראשית, חיות השוחות בחופשיות אינן ניגשות למכשולים במהירות או כיוון קבועים, מה שהופך את התיקון הזוויתי לפחות רלוונטי מבחינה טבעית; שנית, תיקון הגודל הזוויתי ידרוש שינויים בבהירות הכללית של המס, מה שיפעיל את תגובת light ON/OFF המעורבת בזיהוי קרני אור במנגרובים.
- הגדירו את ה-VI (המסופק כחומר משלים, Supplementary File 3) לרכישת הערוצים הבאים בו-זמנית באמצעות ה-DAQ בקצב דגימה של 1 kHz:
7. ניתוח נתונים
- הבחנה בין אותות קוצבי לב (Pacemaker) ב-Igor Pro
הערה: אותות קוצבי שחייה מובחנים מאותות דמויי פוטנציאל פעולה בעקבה האלקטרופיזיולוגית הגולמית לפני ניתוח תדירויות. שני סוגי האותות יכולים להופיע בו-זמנית בהקלטה ויש להבחין ביניהם לפני חילוץ נתוני תזמון של הקוצבים. דוגמאות מייצגות של שני סוגי האותות ומאפייני גל המבדילים ביניהם מוצגים ב-איור 2C,D.- ייבא את קובץ הנתונים בפורמט .txt ל-Igor Pro (גרסה 6.37 ומעלה) באמצעות תוסף Neuromatic (גרסה 2.00).
- הבחן בין אותות קוצבי שחייה לאותות דמויי פוטנציאל פעולה על בסיס משך האות ומורפולוגיית הגל.
הערה: לאותות קוצבי שחייה יש משך אופייני של כ-45 ms ומורפולוגיית גל מורכבת המשקפת את הפעילות המסכמת של מספר נוירונים קוצביים. לאותות דמויי פוטנציאל פעולה יש משך קצר יותר של כ-10 ms וגל יחיד וחד יותר. אמפליטודת האות לבדה אינה קריטריון הבחנה מהימן, שכן שני סוגי האותות יכולים להגיע לאמפליטודות דומות24 (איור 2C,D). איור מייצג המדגים את מאפייני הגל המבדילים בין אותות קוצבי שחייה לאותות דמויי פוטנציאל פעולה מסופק (איור 2C,D). מומלץ למשתמשים להכיר את שני סוגי האותות לפני הניתוח, שכן זיהוי שגוי יוביל לשגיאות בהערכת תדירות הקוצב. מאפייני גל האות עקביים בתוך דגימה נתונה אך עשויים להשתנות מעט בין דגימות; לפיכך, יש להעריך את קריטריוני ההבחנה עבור כל דגימה בנפרד, תוך שימוש במאפייני הגל המתוארים לעיל כהנחיה כללית ולא כספים אוניברסליים קבועים. עבור גלים מעורפלים או בינוניים שלא ניתן לסווג בוודאות, פתור את העמימות בכיוון ההפוך לתוצאה המצופה או המשוערת — לדוגמה, השמט אירוע מעורפל אם ספירת אותים גבוהה יותר תתמוך בהיפותזה הנבדקת, או הכלל אותו אם ספירה נמוכה יותר תתמוך בה — כדי למנוע הגברה מלאכותית של עוצמת התוצאה הנראית. - חלץ את חותמת הזמן של כל אות קוצבי שחייה שזוהה כדי לקבל סדרה זמנית של אירועי קוצב עבור כל הקלטה, וייצא חותמות זמן אלו (למשל, לגיליון אלקטרוני או לקובץ .csv) לצורך ניתוח סטטיסטי בהמשך.
- ניתוח תדירות
- חשב את תדירות אות הקוצב כהופכי של המרווח בין אותות לאורך ההקלטה.
- הערך את השפעת הגירוי הוויזואלי על ידי השוואת תדירות הקוצב במהלך תקופת הבסיס (baseline) לפני הגירוי, תקופת הגירוי ותקופת לאחר הגירוי, תוך שימוש בחותמות זמן של אותות הקוצב המתוקננות להשהיה שבין פקודת ה-TTL שתועדה ב-LabVIEW (Channel 2) לבין תחילת הגירוי שאושרה ב-Arduino (Channel 3).
הערה: העין בעדשה התחתונה מגיבה לגירוי לפי תזמון ה-TTL המאושר, ולא לפי הפקודה שתועדה בתוכנה, לכן זמן התחלה מאושר עבור כל הקלטה מיוצא יחד עם חותמות הזמן הגולמיות של הקוצב וה-TTL לגיליון אלקטרוני (טבלה משלימה 1) ומשמש ישירות את סקריפט הניתוח של SAS כדי לסווג כל אות קוצב לחלון של לפני הגירוי, במהלך הגירוי או אחרי הגירוי (איור 6); לא משנים ערכי חותמות זמן בשלב הגיליון האלקטרוני. בתנאי בסיס ללא הפרעה, תדירות אות הקוצב היא 0.5–1 Hz. תגובות הימנעות ממכשולים שמוחזקות באופן ויזואלי מעל ה-DTT מאופיינות בעלייה בתדירות הקוצב ל-2–3 Hz. המקסימום הפיזיולוגי הוא כ-4 Hz, המתאימים למרווח מינימלי בין אותות של 250–280 ms25. מכיוון שתדירות הקוצב בבסיס משתנה בין דגימות, ערכי התדירות עבור כל הקלטה מנורמלים ביחס לתדירות הממוצעת של אותה הקלטה, המחושבת מתקופות לפני הגירוי ואחרי הגירוי (למעט תקופת הגירוי עצמה). נורמליזציה זו מאפשרת להשוות את עוצמת התגובה בין דגימות ללא תלות בהבדלים בקצב הקוצב הבסיסי. הליכים סטטיסטיים מלאים להערכת מובהות התגובה, כולל המודל הבלתי-ליניארִי המשמש להשוואת תקופות הבסיס, הגירוי ואחרי הגירוי, מתוארים ב-Bielecki et al. (2023)14; קוד ניתוח SAS התואם זמין ב-doi: 10.17632/csgymw8kjk.1. זרימת עבודה מייצגת של ניתוח, מאות גולמי דרך הבחנה, חישוב תדירות ונורמליזציה ועד למדד התגובה הסופי, מוצגת ב-איור 7.
- הערך את השפעת הגירוי הוויזואלי על ידי השוואת תדירות הקוצב במהלך תקופת הבסיס (baseline) לפני הגירוי, תקופת הגירוי ותקופת לאחר הגירוי, תוך שימוש בחותמות זמן של אותות הקוצב המתוקננות להשהיה שבין פקודת ה-TTL שתועדה ב-LabVIEW (Channel 2) לבין תחילת הגירוי שאושרה ב-Arduino (Channel 3).
- חשב את תדירות אות הקוצב כהופכי של המרווח בין אותות לאורך ההקלטה.
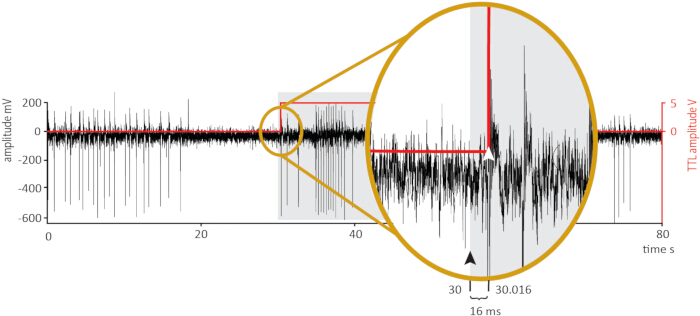
איור 6הדגמה מייצגת של תיקון חותמת זמן של קוצב לב לצורך תזמון מאומת-גירוי. דוגמה להקלטה הממחישה את העיכוב שבין פקודת ה-TTL שתועדה ב-VI לבין תחילת הגירוי שאומתה באמצעות ה-Arduino, אשר אומתה באופן פרטני עבור כל הקלטה באמצעות שרשרת התזמון של ה-Arduino/פוטודיודה ויצאה לגיליון אלקטרוני (טבלה נלווית 1) לשימוש ישיר על ידי סקריפט ניתוח ה-SAS לצורך סיווג של כל חותמת זמן של אות קוצב לב לחלון של טרום-גירוי, גירוי או לאחר-גירוי. קו שחור (ציר y שמאלי): אות אלקטרופיזיולוגי (mV). קו אדום (ציר y ימני): אמפליטודת TTL (V). האזור המוצל באפור מסמן את חלון הגירוי הנומינלי כפי שסומן בחותמת זמן על ידי פקודת ה-TTL שתועדה בתוכנה. תמונה מוקטנת (Inset): מבט מורחב על תחילת ה-TTL. ראש החץ השחור מסמן את זמן השליחה של ה-TTL שתועד ב-LabVIEW (t = 30.000 s, ערוץ 2); ראש החץ הלבן מסמן את תחילת הגירוי המאושרת שזוהתה באמצעות שרשרת ה-Arduino/פוטודיודה (t = 30.016 s, ערוץ 3). מרווח הזמן של 16 מילי-שניות המוצג הוא דוגמה מייצגת בתוך ה- <דווח על טווח של 20 מילי-שניות עבור הפעלה אוטומטית של עכבר באמצעות TTL (תוצאות). מכיוון שעיכוב זה הוא קבוע בתוך הקלטה נתונה, מעבר ההיסט (offset) התואם אינו מוצג באופן נפרד. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
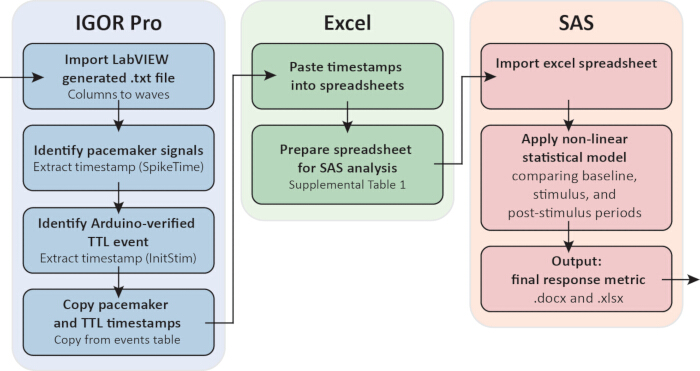
איור 7זרימת עבודה מייצגת של ניתוח, מהקלטה גולמית ועד למדד תגובה סופי. אות סינכרון (Pacemaker signal) וחותמות זמן של TTL מופקים מטבלת האירועים של Igor Pro/Neuromatic: אירועי אות הסינכרון מזוהים על פי משך הזמן ומורפולוגיית גל הנוס (שלב 7.1.2), ותחילת הגירוי שאומתה על ידי ה-Arduino (InitStim, ערוץ 3) מופקת עבור כל הקלטה כחותמת זמן מוחלטת, ולא כעיכוב מחושב. חותמות זמן אלו מועתקות לגיליון אלקטרוני (טבלה משלימה 1), המוכנה לניתוח ב-SAS על ידי חישוב המרווח בין פעימות (Intval) וחותמת הזמן של נקודת האמצע (MidTime) עבור כל אירוע באות קוצב הלב. SAS מייבאת את גיליון הנתונים המוכנה ומחילה מודל סטטיסטי לא-ליניארי (Bielecki et al., 202314השוואת תדירות הקצב (pacemaker frequency) לאורך התקופות שלפני הגירוי, בזמן הגירוי ואחרי הגירוי, אשר סווגו ביחס לתחילת הגירוי המאושרת של כל הקלטה, כדי להפיק את מדד התגובה הסופי (סיכום בקובץ .docx, טבלאות נתונים בקובץ .xlsx). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
תוצאות
איכות האות ופעילות קוצב לב ספונטנית
לאחר חיבור מוצלח של האלקטרודה לעצב הגבעול האפידרמלי (epidermal stalk nerve) שנחתך, אותות קוצב לב ספונטניים צריכים להופיע מיד באוסצילוסקופ. הקלטה באיכות גבוהה מאופיינת באות קוצב לב גדולים וברורים בעלי אמפליטודה של 40–600 mV לאחר הגברה, המתרחשים בתדר ספונטני יציב של 0.5–1 Hz, על רקע רמת רעש נמוכה (סטיית שיא של כ-10–15 mV משני צדי האפס, המקבילה ליחס אות לרעש של כ-27–40:1 בטווח האמפליטודה המבוקש) (איור 5B). ניתן לנתח הקלטות עם אמפליטודת אות נמוכה עד 100 mV, אך אלו מגדילות משמעותית את זמן הבחנת האות ב-Igor Pro ואינן מומלצות, במיוחד עבור מפעילים חסרי ניסיון. מורפולוגיית גל המורכב של אות קוצב הלב, המשקפת את הפעילות המסוכמת של מספר נוירוני trmOC, מבדילה אותו מאות דמויי פוטנציאל פעולה קצרים וחדים יותר שעשויים להופיע גם הם בהקלטה24 (איור 2C,D). כפי שמתואר בשלב 7.1, יש להבחין בין שני סוגי אותות אלה לפני הניתוח על בסיס משך האות (~45 ms עבור אותות קוצב לב לעומת ~10 ms עבור אותות דמויי פוטנציאל פעולה) ומורפולוגיית הגל. אמפליטודה לבדה אינה קריטריון הבחנה מהימן. הבחנת האות בפרוטוקול זה בוצעה על ידי מפעיל מנוסה אחד; לכן, לא חושבו סטטיסטיקות רשמיות של מהימנות בין בודקים (ראו Discussion, Limitations).
תגובת קוצב הלב המעוררת חזותית
בהכנה בריאה ותגובתית, הצגת גירוי של פס אנכי נע מעל ה-DTT לעין בעלת העדשה התחתונה מניבה תגובת קוצב (pacemaker) ברורה המסונכרנת בזמן. תדירות אות הקוצב עולה ל-2–3 Hz, במקביל למעבר הקצה המוביל של המכשול דרך מרכז השדה הראייתי, וחוזרת לתדירות הבסיס לאחר הפסקת הגירוי14 (איור 5B). תזמון תחילת הגירוי אומת באמצעות שרשרת תזמון של Arduino/פוטודיודה (שלב 3.3), במקום להסתמך על חותמת הזמן המדווחת של LabVIEW. בשימוש בעכבר TTL להסמכת תוכנת ההצגה, הטווח המאומת הוא <20 ms; בשימוש בהפעלה ידנית (מפעיל הלוחץ על עכבר רגיל בתזמון תחילת הגירוי הרצוי), הטווח המאומת הוא 10–150 ms. מכיוון שניתוח התגובה משתמש בתחילת הגירוי המאומת (ערוץ 3) ולא בטריגר המדווח על ידי התוכנה (ערוץ 2), טווח זה אינו משפיע על כימות התגובה ללא קשר לשיטת ההפעלה. עלייה זו בתדירות מהווה את המתאם האלקטרופיזיולוגי של התנהגות הימנעות ממכשולים שנצפתה בבעלי חיים השוחים בחופשיות, ונוכחותה מאשרת הן את חיות ההכנה והן את היישור האופטי הנכון של העין בעלת העדשה התחתונה ביחס למסך ההקרנה.
עוצמת התגובה לקוצב הפעימות מוערכת באמצעות תדירות אות רגעית, המחושבת כהופכי של המרווח בין אותות עוקבים של אירועי קוצב הפעימות. גישה זו דורשת לפחות שני אותות עוקבים מקוצב הפעימות כדי לקבוע ערך תדירות, ובכך מספקת הגנה מובנית מפני זיהוי תגובה חיובית שגויה (false-positive) מתוך אותות בודדים ומבודדים.
ניגודיות גירוי הפס הנע קובעת את עוצמת התגובה המעוררת. במחקרם של Bielecki et al. (2023)14, נעשה שימוש בשלוש רמות ניגודיות (c = 0.20, 0.40, ו-0.80), במרווחים של f-stop אחד. ערכי ניגודיות ספציפיים אלו נבחרו כדי לשמור על משך הפרוטוקול הכולל בתוך חלון ההקלטה הישים, שהוא כ-1 h. חוקרים הבוחנים את גבולות הרגישות לניגודיות של העין עם העדשה התחתונה, או תכונות ספציפיות אחרות של תגובה חזותית, צריכים לבחור רמות ניגודיות המתאימות לשאלת המחקר שלהם במקום לאמץ ערכים אלו באופן גורף.
הקלטות תת-אופטימליות ומצבי כשל
בפועל, כ-90% (9 מתוך 10) מההכנות העומדות בקריטריון החיוניות של האקלמיזציה (שלב 6.1.6) מניבות בסופו של דבר פעילות ספונטנית יציבה ותגובה ויזואלית מעוררת מדידה; שיעור זה תלוי במידה רבה בניסיונו של המפעיל. ההכנות הנותרות נכשלות לרוב מאחת הסיבות הבאות: אופן הכישלון הנפוץ ביותר הוא אובדן הדרגתי של אטם האלקטרודה במהלך סשן ההקלטה. הדבר בא לידי ביטוי בהפחתה הדרגתית הן באמפליטודת אות קוצב הפעולות (pacemaker) והן ברמת רעש הרקע, דבר המשקף הידרדרות במגע החשמלי בין קצה האלקטרודה לסיום העצב (איור 5A). אם תבנית זו נצפית, יש לשחרר את השאיבה ולהחיל אותה מחדש לאחר מיקום מחדש של קצה האלקטרודה מעט על פני השטח של הגבעול החתוך. אם אמפליטודת האות אינה משתקמת, יש להעריך את חיוניות ההכנה על ידי בדיקה של פעילות קוצב פעולות ספונטנית. היעדר מוחלט של אות לאחר ניסיונות חיבור מחדש, בהכנה שבודדה למשך יותר מ-1 h, משקף ככל הנראה הידרות של ההכנה ולא כשל באלקטרודה, ובמקרה זה יש להשתמש בהכנה טרייה.
מצב כשל שני הוא היעדר תגובה שמעוררה חזותית למרות פעילות קוצב לב ספונטנית ויציבה. מצב זה צריך להוביל להערכה מחדש של התצורה האופטית לפני שנקבע כי הדגימה אינה מגיבה. הסיבות השכיחות ביותר הן חוסר יישור של העדשה התחתונה ביחס למסך ההקרנה ורוויה של הפוטורספטורים עקב קרינה מוגברת. יש לחזור על הליך הכיול הביולוגי המתואר בשלב 4.1.5, ולהגביר את הניחות באמצעות מסנן צפיפות ניטרלית במידת הצורך. יש לוודא גם שגירוי הפס המניע נשאר בתוך השדה הראוי לאורך כל תנועתו, שכן יציאת הגירוי מהשדה הראוי תעורר תגובת light-OFF ותכניס פעילות קוצב לב שגויה להקלטה.
דפוס שלישי — רעש רקע גבוה המסווה את אותות קוצב הלב — משקף לרוב בעיה בהארקה או הפרעות מרשת החשמל. יש לוודא את תצורת ההארקה במבנה כוכב המתוארת בשלב 3.2.1, ולאשר כי מסנן ה-notch בתדר 50/60 Hz מופעל.
קובץ משלים 1: סקיצת Arduino. מממש זיהוי תחילת גירוי המבוס על פוטודיודה: ה-Arduino Uno דוגם את הפוטודיודה, מנטר את ריבוע האינדיקטור השחור-לבן על צג ההצגה (שלב 1.4.2) בתדר של 1 kHz, ממיר את האות האנלוגי הגולמי לפולס TTL דיגיטלי נקי באמצעות השוואת סף, ומוציא פולס זה כאות תזמון גירוי מאומת (ערוץ 3, שלב 6.2.1).אנא לחץ כאן להורדת קובץ זה.
קובץ משלים 2: קובץ גירוי מייצג. דוגמה לקובץ תוכנת מצגות (Keynote) המממש את גירוי הראייה של פס נע כאנימציה של אובייקט רציף יחיד, ואת ריבוע מחוון אימות התזמון בשחור-לבן (שלב 1.4). קוראים המתכננים רצפי גירויים משלהם צריכים לוודא שהתצוגה נשארת יציבה למשך תקופת אקומודציה מספקת לפני תחילת כל גירוי; לולאת המשוב של הפוטודיודה/Arduino (שלב 3.3) מאמתת את תזמון הגירוי הממשי ללא קשר לתוכנת המצגות הספציפית או לעיצוב השקף שבהם נעשה שימוש.אנא לחצו כאן כדי להוריד קובץ זה.
קובץ משלים 3: מכשיר וירטואלי (VI) של LabVIEW. הגדירו את ה-NI USB-6343 DAQ עם שני ערוצי קלט אנלוגיים — AI0 (אות אלקטרופיזיולוגי מהמגבר) ו-AI1 (אות TTL של תחילת גירוי המאומת על ידי Arduino, אות המשוב מהפוטודיודה) — וערוץ פלט אנלוגי אחד, AO0, המספק פולס TTL לעכבר ה-TTL בזמן הגירוי המתוכנת כדי להקדם את השקף בתוכנת ההצגה. קובץ הפלט בפורמט .txt שנוצר מתעד שלוש עמודות: האות האלקטרופיזיולוגי (AI0), חותמת הזמן של פקודת הטריגר של AO0 שתועדה ב-LabVIEW (רישום תוכנתי, לא אות שנרכש מחדש), וה-TTL המאומת על ידי Arduino (AI1).אנא לחצו כאן להורדת קובץ זה.
טבלה משלימה 1: פורמט קובץ קלט עבור SAS. הגדרות עמודות ודוגמה מפורטת עבור גיליון הנתונים המועלה ל-SAS לצורך ניתוח סטטיסטי (שלב 7.2.1). ארבעה חותמות זמן עוקבות של אותות קוצב לב מהקלטה מייצגת ממחישות את גזירת מרווח הבין-ספייק (Intval) וחותמות הזמן של נקודת האמצע (MidTime) המשמשות לחישוב התדר; לאירוע האחרון הרשום אין ערך Intval/MidTime, מכיוון שאין חותמת זמן עוקבת להשלמת המרווח.אנא לחצו כאן להורדת הקובץ.
דיון
מספר שלבים בפרוטוקול זה הם קריטיים להשגת הקלטות מהימנות. המשמעותי ביותר הוא הייצור וההכנה של אלקטרודת היניקה. בעוד שכל אלקטרודה הממקסמת את יחס אות לרעש היא מקובלת עבור הקלטות סטנדרטיות של קוצב לב בעירור חזותי, התנגדות מחוברת של כ-1 MΩ הופכת לקריטית במיוחד כאשר ההכנה משמשת למתן גירוי חשמלי לא מותנה, שכן היא נדרשת לחישוב הזרם שהועבר14. למטרות הקלטה בלבד, הקריטריון העיקרי הוא איכות האות ולא ערך התנגדות ספציפי.
קריטי באותה מידה הוא הכיול הביולוגי של המערכת האופטית לפני תחילת ההקלטות (שלב 4.1.5). מכיוון שפלט המקרן, תצורת העדשות והחזרת המסך משפיעים יחד על הקרינה האפקטיבית בעדשת העין התחתונה, לא ניתן להגדיר ערך קרינה אחד שיה רלוונטי לכולם. הכיול הביולוגי (המשתמש בתגובת התדר של קוצב הלב לגירוי בניגודיות מקסימלית כקריטריון לטווח הדינמי של הפוטורספטורים) מספק שיטה המאמתת את עצמה ואינה תלויה בחומרה לקביעת עוצמת גירוי מתאימה. אין להשמיט שלב זה, שכן רוויה של הפוטורספטורים עקב קרינה מוגברת תבטל תגובות קוצב לב המעוררות חזותית, ועלולה להתפרש בטעות כדגימה שאינה מגיבה.
שמירה על טבילה מלאה של ה-rhopalium לאורך כל שלבי הבידוד וההעברה היא קריטית. מערכת העצבים של ה-rhopalium רגישה ביותר להתייבשות, ואפילו חשיפה קצרה לאוויר עלולה לגרום נזק בלתי הפיך לדגימה. יש לבצע את כל שלבי ההעברה בנוכחות מי ים, ויש למלא את תא ההקלטה במי ים ממיכל תרבית שעברו סינון של 0.20 µm לפני הכנסת ה-rhopalium.
לבסוף, מיקום האלקטרודות על פני השטח של הגבעול החתוך דורש סבלנות. קצות העצבים האפידרמליים של הגבעול לא תמיד ניתנים לזיהוי חזותי, ויש לאשר את המיקום הנכון באמצעות הופעת אותות קוצבי לב (pacemaker) ספונטניים באוסצילוסקופ.
הגורם השכיח ביותר לכישלון בהקלטה הוא אובדן האיטום של האלקטרודה במהלך הסשן. כדי למזער סיכון זה, יש להשלים את כל הפרוטוקולים בתוך שעה אחת מרגע בידוד ה-rhopalium. הגבלת השעה המומלצת כאן היא בחירה מעשית שמרנית, המשקפת את הציפייה הכללית שבידוד עצבי, המנותק משאר בעל החיים, אינו יכול להיחשב כמייצג באופן מלא תפקוד פיזיולוגי תקין ללא הגבלה, גם במקרים שבהם פעילות ה-pacemaker נמשכת. rhopalia מבודדים נשארים חיוניים, במובן של יצירת אותות pacemaker ניתנים לגילוי, למשך זמן ארוך משמעותית מחלון ההקלטה המשמש בפרוטוקול זה, עד לכ- 5 h לאחר הבידוד; עם זאת, השאלה האם תגובות שהוקלטו בשלב מאוחר של חלון זה נשארות מייצגות באופן מלא דגימה תקינה לא אופיינה באופן שיטתי, ומגבלת ה- 1 h משמשת כבצח שמרני ולא כסף מוגדר במדויק. אובדן הדרגתי של איטום האלקטרודה הוא מצב כישלון טכני נפרד שניתן לזהותו בקלות והוא הגורם השכיח ביותר לאובדן אות במהלך סשן הקלטה בודד (ראה להלן), אך הדבר אינו שולל תרומה של מצב הדגימה לשינויים עדינים יותר בתגובתיות לאורך זמן. אם אובדן איטום מתרחש במהלך הקלטה, ניתן לשחרר את השאיבה, למקם מחדש את האלקטרודה על פני השטח של הגבעול החתוך, ולהפעיל את השאיבה מחדש. עם זאת, אם הדגימה בודדה למשך יותר משעה אחת, מומלץ להתחיל עם דגימה חדשה במקום להשקיע זמן בפתרון בעיות בדגימה שחיוניותה פוגעת.
יש להתייחס להגדרות הסינון כנקודות מוצא ולא כפרמטרים קבועים. ערכי מסנן פס-העברה (bandpass) המפורטים בפרוטוקול זה (highpass 1 Hz, lowpass 50 Hz, notch 50/60 Hz) הם אלה הממקסמים את יחס אות לרעש בסביבת ההקלטה של המחברים. מעבדות עם רמות שונות של הפרעות חשמליות, או כאלו המשתמשות בדגמי מגברים שונים, עשויות להידרש להתאים הגדרות אלו באופן אמפירי בבקרת המגבר, תוך ניטור האות בתצוגת האוסצילוסקופ בתחילתה של כל סשן.
אם פעילות קוצב לב ספונטנית אינה קיימת לאחר חיבור האלקטרודה, יש להעריך את הדגימה לפני ביצוע בדיקה לפתרון תקלות של האלקטרודה. רופליום (rhopalium) מבודד ובריא יראה אותות קוצב לב ספונטניים בתדר של 0.5–1 Hz תוך דקות ספורות מחיבור האלקטרודה. היעדר פעילות ספונטנית משקף לרוב נזק לדגימה במהלך הבידוד או ההעברה, ולא כשל באלקטרודה. לעומת זאת, אם קיימת פעילות ספונטנית אך לא התקבל מענה מעורר-אופטי, יש לחזור על הכיול האופטי לפני שקבעים כי הדגימה אינה מגיבה.
עבור מעבדות המתאימות פרוטוקול זה לחומרה שונה, ניתן להחליף את שרשרת אימות התזמון של עכבר ה-TTL ו-Arduino Uno המתוארת בשלב 3.3 בכל מערכת המספקת רישום של חלון גירוי ברמת החומרה, שאינו תלוי בתוכנה, ונרכש באופן סינכרוני עם העקבה האלקטרופיזיולוגית. המימוש הספציפי המתואר כאן פותח כדי לגשר בין סביבת הרכישה של LabVIEW במחשב PC לבין תוכנת ההצגה במחשב נפרד, והוא משקף פתרון הנדסי מעשי לאתגר נפוץ של אינטגרציה בין פלטפורמות שונות. העיקרון הבסי, לפיו טריגרים של תוכנה לבדם אינם מספיקים לניתוח מדויק של תזמון גירוי-תגובה, תקף ללא קשר לפלטפורמת החומרה הספציפית שבה נעשה שימוש.
המגבלה העיקרית של הכנת הרופליום המבודד היא שהיא מקליטה מרופליום בודד באופן מבודד. בבעל החיים השלם, ארבעת הרופליה מחוברים באמצעות עצב הטבעת15 והפלט שלהם עובר אינטגרציה כדי להפיק התנהגות שחייה מתואמת. תקשורת בין-רופליאלית אינה נגישה בהכנה זו. עם זאת, לצורך חקירת עיבוד מידע חזותי בתוך מערכת עצבים רופליאלית בודדת, בידוד זה מהווה יתרון ולא חיסרון. הוא מסיר את ההשפעה המבלת של קלטים מרופליה אחרים ומאפשר לאפיין במלואם את תכונות התגובה החזותית של RNS בודד.
בידוד ה-rhopalium שולל גם הקשר חושי רב-ממדי מעבר ל-rhopalium עצמו; הקשבנים הכימיים המשוערים שתוארו אנטומית על פניו17 לא קושרו תפקודית לתגובת קוצב הפעימות (pacemaker response), ולכן ניתן לפרש את האות באופן סביר כקריאה של עיבוד חזותי שאינו מסובך במידה רבה על ידי קלט לא-חזותי. מגבלה בסיסית יותר היא שההקלטה מהעצב של הגבעול החוץ-תאי לוכדת רק את אות הפלט המוטורי המשולב של ה-trmOC. לא ניתן להבחין בין תרומות של subOC בודדים לעיבוד החזותי בשיטות אלקטרופיזיולוגיות; דבר זה מחייב גישות של דימיון in vivo ברזולוציה מרחבית. לפיכך, השיטה האלקטרופיזיולוגית המתוארת כאן היא מדד לפקודה המוטורית המשולבת הסופית, ולא לשלבי העיבוד הביניים בתוך ה-RNS.
לכך יש השלכה מעשית חשובה: פרוטוקול האלקטרופיזיולוגיה של rhopalium מבודד אינו שיטה שעומדת בפני עצמה. חיוני לבצע ניתוח התנהגותי של החיה השלמה לפני תכנון ניסויי rhopalium מבודד, וזאת כדי לקבוע אילו גירויים חזותיים מניעים התנהגויות המשנות את תדירות התכווצות הפעמון. לא ניתן להעריך באמצעות גישה זו התנהגויות שאינן גורמות לשינוי בתדירות אות הפייסמייקר. המדידה האלקטרופיזיולוגית היא ספציפית מדד של פלט מוטורי של שחייה, ותכנוני ניסויים חייבים להיות מעוגנים באפיון התנהגותי מקדים כדי להבטיח שהגירויים שנבחרו מפעילים פלט זה.
הצלחת ההקלטה וסיווג האות תלויים שניהם בניסיון המפעיל. כ-90% מההכנות שעומדות בקריטריון החיוניות של ההסתגלות (שלב 6.1.6) מניבות פעילות ספונטנית יציבה ותגובה ויזואלית מעוררת מדידה בידיו של מפעיל מנוסה; שיעור זה צפוי להיות נמוך יותר בשלבים המוקדמים של עקומת הלמידה. הבחנה בין אותות (Signal discrimination) של קוצבי לב (pacemaker) לבין גלי סוג של פוטנציאל פעולה (שלב 7.1.2) בוצעה במחקר זה על ידי מפעיל מנוסה יחיד; כיוון שבדיקת מהימנות רשמית בין בוחנים (inter-rater reliability) דורשת מספר צופים עצמאיים, לא ניתן היה לחשב נתון סטטיסטי של הסכמה בין בוחנים. במקום זאת, עקביות פנימית נשמרה על ידי השוואת גלי צורה מעומבנים לאות בעל זהות ידועה באותה הקלטה, בדרך כלל תגובה מעוררת בניגודיות מקסימלית.
בחירות החומרה והתוכנה בפרוטוקול זה — עדשת מקרן שונה, עכבר TTL מותאם אישית, שרשרת תזמון של Arduino ותוכנות LabVIEW/Igor Pro/SAS — משקפות את הציוד והמומחיות שזמינים כבר במעבדת המחברים ולא דרישה של השיטה עצמה. עדשת המקרן שונה מכיוון שהתצורה הסטנדרטית לא ענתה על דרישות ההקמה. עכבר ה-TTL מגשר בין מחשב הגירוי למחשב הרכישה: LabVIEW שולח פולס TTL לעכבר ומתעד את זמן השליחה (Channel 2), והלחיצה על העכבר מפעילה את בניית הגירוי באמצעות USB. מכיוון שההשהיה בין טריגר זה, המתועד, לבין השינוי בפועל על המסך היא משתנה, שרשרת עצמאית של פוטודיודה/Arduino מאמתת את תחילת הגירוי האמיתית ומזינה TTL שני בחזרה ל-DAQ (Channel 3); ייתכן שקיימת חלופה מסחרית לעכבר, אך היא אינה ידועה למחברים. אף אחד מחלקי חומרה אלו אינו דורש מיומנות ייצור מיוחדת או עלות גבוהה, וכל מערכת רכישה חלופית צריכה רק לעמוד באותה דרישה של דגימה רב-ערוצית מסונכרנת ב-1 kHz, בתוספת כל מומחיות באלקטרוניקה או בתכנות שדבר זה כרוך בו. למעט חריג אחד: התאמה אישית של מגבר אנלוגי מתאים דורשת מומחיות בתכנון מעגלים בעלי רעש נמוך, שאינה מונחת כבסיס אצל הקורא.
*T. cystophora* משלב את התחכמות הוויזואלית של מערכות ניתנות למניפולציה גנטית כגון דרזופילה ודגי דג-זברה עם יכולת הניתוח ברמת המעגל של מערכות פשוטות מבחינה מספרית כגון C. elegansמערכת העצבים של הרופליום כוללת כ-1,00 נוירונים, בהשוואה לסדר גודל של 20,0 ב- זבוב הפירות (Drosophila) מוח1 ו-302 בכל ה- C. elegans מערכת העצבים2יתרון נוסף של מערכת זו הוא ההיררכיה החושית שלה: *T. cystophora* בעל מספר מודליות תחושתיות, הכוללות קליטה מכנית (המעורבת תפקודית בלמידה אסוציאטיבית14) וקליטה כימית משוערת (תיאור אנטומי שנעשה, אך לא הודגם תפקודית17), בנוסף לראייה. עם זאת, בתוך תכשיר ה-rhopalium המבודד, רק הראייה הוכחה תפקודית כגורם המניע את תגובת קוצב הפעימות (pacemaker) הנמדדת בפרוטוקול זה, מה שמאפשר לפרש את האות כקריאה נקייה יחסית של עיבוד חזותי, ללא הסיבוך הפרשני הנובע ממצבים שבהם מספר חושים פעילים בו-זמנית מעצבים יחד תגובה התנהגותית. ניתן להגדיר גירויים חזותיים בדיוק רב מבחינת מרחב, זמן וניגודיות (contrast), בעוד שניתן להשתמש באות קוצב הפעימות כמד כמותי (proxy) לפלט מוטורי המונע על ידי ראייה, הרלוונטי להתנהגות החיה השלמה.14.
מעבר לאלקטרופיזיולוגיה חזותית, תכשיר ה-rhopalium המבודד יושם בהצלחה במחקר פרמקולוגי של ה-RNS באמצעות בדיקות של מוליכים עצביים ונוירומודולטורים המוחלטים לאמבט, מה שאפשר זיהוי של מערכות המוליכים המווסתות את פלט קוצב הפעימות (pacemaker)24. התכשיר מתאים גם לגישות של דימוי סידן ומתח. עבודה ראשונית שטרם פורסמה במעבדת המחברים, המשתמשת באינדיקטור סידן חודר-תאים, תומכת בהיתכנות של דימוי סידן בתכשיר זה; דימוי מתח טרם נבחן. גישות כאלה עשויות לבחון ישירות את ארכיטקטורת רשת ה-subOC–trmOC עצמה, שנותרה מודל עבודה, ותספק את הרזולוציה המרחבית הדרושה כדי לחקור את פעילות ה-subOC וה-trmOC באופן עצמאי במהלך גירוי חזותי, יכולת שהקלטה חוץ-תאית לבדה אינה יכולה לספק. יחד, גישות משלימות אלו ממצבות את ה-rhopalium המבודד של T. cystophora כתכשיר נגיש מאוד למחקר ברמת מערכת של עיבוד חזותי ואינטגרציה סנסורי-מוטורית במערכת עצבים בעלת מורכבות מוגדרת ומוגבלת.
גילויים
המחברים מצהירים כי אין להם ניגודי אינטרסים.
תודות
המחברים מודים ל-Dan-eric Nilsson על השימוש בתמונת ה-rhopalium (איור 1B), על הסיוע הטכני שניתן על ידי Mathias Hoppe, Ingo Klein, Olaf Wendt ו-Holger Voigt (אוניברסיטת Kiel), ועל העזרה של חברי קבוצת הביולוגיה החושית (אוניברסיטת קופנהגן) בתחזוקת התרביות. במימון ה-Deutsche Forschungsgemeinschaft (DFG, קרן המחקר הגרמנית) – Project-ID 567357102 (J.B.)
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| צלחת פטרי 35 מ"מ | Nunc | 153066 | כל צלחת פטרי מקבילה ומתאימה |
| Arduino Uno | Arduino | — | מיר אות פוטודיודה ל-TTL לצורך אימות תזמון הגירוי; קצב רענון של 1 kHz |
| עדשה דו-קמורה f = 30 mm | לינוס | G063-02-0 | הוחלף בעדשת יצרן; ממקד את התמונה על קיר מסך ההקרנה של תא ההקלטה |
| צינור קפילריה מזכוכית בורוסיליקאט, קוטר פנימי 1.16 מ"מ × קוטר חיצוני של 2.0 מ"מ × 80 מ"מ אורך | מוצרי מדע | GB20-8P | לייצור אלקטרודות יניקה |
| פיפטת העברה חד-פעמית | Sarstedt | 86.1171 | חתוך את הקצה עד לפתח של כ-8 מ"מ לצורך העברת בעלי חיים |
| תושבת אלקטרודה PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | תושבת מסוג BNC עם פתח יניקה; מסופקת עם חוט כסף (Ag) בעובי של כ-0.25 מ"מ |
| מגבר חוץ-תאי EXT-10-2F | NPI Electronic | — | מגבר דיפרנציאלי עם צימוד AC; שלב ראש (headstage) ×10, מגבר ראשי ×10, הגבר כולל ×10; מסנן פס-מעבר משולב: מסנן מעביר-גבוה 1 Hz, מסנן מעביר-נמוך 50 Hz; תוספת מסנן חסם (notch filter) ל-50/60 Hz מופעלת; מסופק עם זרוע למגבר קדם (headstage) |
| זכוכית כיסוי להמציטומטר 20 מ"מ × 26 מ"מ | Carl Roth | L 189 | נשען על דפנות הזכוכית של כיסוי העצית באמצעות ציפה שלילית; עמיד יותר מכיסויי עצית סטנדרטיים |
| Igor Pro 6.37 | WaveMetrics Inc. | גרסה 6.37 | לייק אוסווגו (Lake Oswego), אורגון (OR), ארה"ב; לצורך ניתוח אותות של קוצב לב |
| LabVIEW 2016 | National Instruments | גרסה 2016 | תוכנה לרכישת נתונים ולבקרת גירויים; סרטון הדרכה (VI) סופק כחומר נלווה |
| מזרק עם חיבור Luer-lock | — | — | גנרי; כל מזרק Luer-lock סטנדרטי למעבדה שמתאים |
| Microforge MF-2 | Narishige | — | עבור ליטוש קצה האלקטרודה (אפשרות A) |
| מיקרו-מניפולטור MM3 | מ'äנא ספק את הטקסט באנגלית שברצונך לתרגם.äמשתמש Wetzlar | 0-42-101-0 (ימין) / 0-42-102-0 (שמאל) | מערכת שלוש צירים ידנית; נדרשים שניים (להחזקת הפ pipette ואלקטרודת הרישום) |
| מכשיר למתיחת מיקרופיפטות, Flaming/Brown P-100 | Sutter Instrument | P-10 | תוכנית משיכה: שורה 1×1: חימום 535, משיכה 0, מהירות 12, זמן 20, לחץ 60, רמפה 540; קווים 2–4 × 3: חימום 532, משיכה 0, מהירות 12, זמן 10 |
| תוסף Neuromatic גרסה 2.0 | — | גרסה 2.0 | עבור Igor Pro; הבחנה בין אותות קוצב לב והפקת חותמות זמן |
| מסנן צפיפות ניטרלית | Thorlabs | NE10A | העברה של 10%; יש לתקף את הנחתית באופן אמפירי באמצעות כיול ביולוגי (שלב 4.1) |
| NI USB-6343 DAQ | National Instruments | 781438-01 | DAQ רב-תכליתי של 16 סיביות; רכישת נתונים אלקטרופיזיולוגיים, הגשת גירוי TTL לעכבר, כניסת Arduino TTL; קצב דגימה של 1 kHz |
| מקרן Optoma ML750 DLP | Optoma | ML750 | מערכת העדשות של היצרן הוסרה; במקומה הותקנה עדשה בולטת משני הצדדים (biconvex) אחת בעלת אורך מוקד f = 30 ממ'. |
| אוסילוסקופ DS1102E | Rigol | DS102E | לניטור אותות בזמן אמת במהלך מיקום האלקטרודות ואופטימיזציה של מסננים |
| פיפטת פסטור 150 מ"מ | Carl Roth | 4518 | להעברת הרופליום (rhopalium) |
| פוטודיודה BRW21 | OSRAM | BRW21 | פוטודיודה מסיליקון; מנטרת ריבוע אינדיקטור שחור ולבן על מסך המחשב |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | קרי, צפון קרוליינה, ארה"ב; ניתוח סטטיסטי של תגובת קוצב לב; הקוד זמין ב-doi: 10.17632/csgymw8kjk.1 |
| צינור סיליקון | Erich Eydam KG | 9205000 | לחיבור שאיבה בין מחזיק האלקטרודה למזרק |
| מסנן מזרק Filtropur S, 0.20 µm PES | Sarstedt | 83.1826.001 | לסינון מי ים ממיכל גידול עבור תא ההקלטה וצלחות ההכנה |
| מספרי ואנאס (Vannas scissors) | World Precision Instruments | 500086 | 0.025 מ"מ × להב בעובי 0.015 מ"מ; לחיתך של גבעול הרופליום (rhopalial stalk) |
| WTE var 3185 | עוזר | — | בקר טמפרטורה למקלח מים |
מקורות
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.