אנו מציגים פרוטוקול פשוט לשחזור של סופר-קומפלקסים נשימתיים מיטוכונדריאליים פונקציונליים לתוך פרוטאו-ליפוזומים מוגדרים היטב, לצורך אפיון מבני ותפקודי מתואם.
מאמר שיטה
שחזור תפקודי של סופר-קומפלקסים נשימתיים מיטוכונדריאליים
* These authors contributed equally
במאמר זה
סיכום
תקציר
מיטוכונדריה הן מוקדים מרכזיים במטבוליזם ביו-אנרגטי ומהוות את המקור העיקרי ל-ATP. ממברנת המיטוכונדריה הפנימית מאכלסת את מערכת הפוספורילציה החמצונית, הכוללת את קומפלקסיה של שרשרת העברת האלקטרונים (CI, CII, CIII2, ו- CIV) ואת ה-ATP synthase (CV). ביונקים, CI, CIII2, ו-CIV יוצרים מבנים מסדר גבוה יותר הנקראים סופר-קומפלקסים (SCs), כגון SC I+III2+IV, SC I+III2, ו-SC III2+IV. למרות שהגורמים הפיזיולוגיים המעודדים את היווצרות ה-SC נותרו לא ברורים, הועלה השער כי היווצרות SC עשויה להגביר את קצבי העברת האלקטרונים בין הקומפלקסים, להפחית את ייצור רדיקלי החמצן (reactive oxygen species), או למנוע אגרגציה לא ספציפית של חלבונים בתוך ממברנת המיטוכונדריה הפנימית הצפופה. מחקרים מבניים ותפקודיים של SCs נשימתיים התבססו רבות על קומפלקסים שהופקו באמצעות דטרגנטים. בעוד שמחקרים אלו שיפרו את הבנתנו לגבי שרשרת העברת האלקטרונים, היעדרה של שכבה כפולה סגורה של ממברנה מגביל את היכולת לבחון את היתרונות התפקודיים של הרכבת הסופר-קומפלקסים. עם זאת, התקדמויות אחרונות הראו שניתן לאפיין מבנית חלבוני ממברנה בסביבות ממברנה משוחזרות דמויות-טבעיות, מה שמספק הקשר פיזיולוגי יותר לחקירות אלו. כאן, אנו מציגים פרוטוקול פשוט, מהיר וניתן לשחזור לשחזור של SCs נשימתיים לתוך ליפוזומים. שיטה זו מאפשרת לבחון את ההשפעות של הרכבי ליפידים משתנים, ריכוז חלבון ופוטנציאל ממברנה על התפקוד של SCs נשימתיים, ובכך מספקת כלי בעל ערך למחקרי מנגנונים עתידיים.
מבוא
מיטוכונדריה הן מרכזיות לנשימה של איקריוטים. ממברנת המיטוכונדריה הפנימית (IMM) מאכלסת את מערכת הפוספורילציה החמצונית, הכוללת את קומפלקסי שרשרת העברת האלקטרונים (CI–CIV) ואת ה-ATP synthase (CV)1. CI ו-CII מעבירים אלקטרונים ממצעים מוreducers ל-ubiquinone (CoQ), ובכך מייצרים ubiquinol (CoQH2), המעביר אלקטרונים דרך CIII2 ובאמצעות cytochrome c ל-CIV, שם חמצן עובר רדוקציה למים. שאיבת פרוטונים על ידי CI, CIII2 ו-CIV יוצרת את הכוח המניע הפרוטוני (PMF), המשמש את CV לצורך סינתזה של ATP מ-ADP ופוספט אנאורגני (P)1.
בנוסף לתפקוד עצמאי, CI, CIII2 ו-CIV יכולים להתרכב למבני סופר-קומפלקס (SC) מסדר גבוה עם סטוכיומטריה מוגדרת, כגון SC I+III2+IV (הידוע גם כ-respirasome), SC I+III2 ו-SC III2+IV2,3,4,5. היתרונות התפקודיים של התקבצויות אלו נותרו לא ברורים6. השערות לגבי תפקידם נעות בין תפקידים בהרכבה ובתעלה של סובסטרט (substrate channeling) לבין היותם תוצר לוואי של צפיפות החלבון הגבוהה בממברנה המיטוכונדריאלית הפנימית (IMM)3,7,8,9,10,11,12,13,14,15. מחקרים אחרונים מצביעים על כך שתכונות ממברנה, כולל מאמץ ממברנה המושרה על ידי אי-התאמה הידרופובית (hydrophobic mismatch), אינטראקציות חלבון-חלבון ואינטראקציות חלבון-ליפיד, תורמים להיווצרותם וליציבותם של ה-SC16.
מחקרים מבניים ותפקודיים של חלבוני ממברנה התבססו באופן מסורתי על קומפלקסים המומסים בדטרגנט, אשר משבשים את סביבת הממברנה הטבעית ומגבילים את חקירת תהליכים התלויים בפוטנציאל ממברנה ובממסי גרדיאנטים של יונים. לעומת זאת, התקדמויות אחרונות מראות כי ניתן לאפיין מבנית חלבוני ממברנה בממברנות ששוחזרו17,18,19 או בממברנות טבעיות20,21,22,23, מה שמשפר משמעותית את יכולתנו לבחון מנגנונים תפקודיים של חלבוני ממברנה התלויים בפוטנציאל ממברנה ובגרדיאנטים של יונים.
פרוטוקול זה מתאר שיטה פשוטה וניתנת לשחזור להרכבה מחדש של סופר-קומפלקסים (SCs) נשימתיים מיטוכונדריאליים לתוך פרוטאו-ליפוזומים מוגדרים. המערכת המתקבלת מספקת פלטפורמה רבת עוצמה לחקירת שאלות יסוד הקשורות להיווצרות, יציבות ותפקוד של SCs נשימתיים בסביבת ממברנה מבוקרת ודומה למצב הטבעי. על ידי שילוב של CoQ10 וציטוכרום c במהלך ההרכבה מחדש, אנו מדגימים כי ה-SCs שהורכבו מחדש בפרוטאו-ליפוזומים תומכים בצריכת חמצן המונעת על ידי NADH, מה שמעיד על כך שהקומפלקסים נותרים תפקודיים בתוך השכבה הליפידית הכפולה. אנו מראים בנוסף שניתן להדמיות ה-SCs בפרוטאו-ליפוזומים בקלות באמצעות מיקרוסקופיה אלקטרונית קריוגנית (cryo-EM), ובכך לאפשר מתאם ישיר בין הארגון המבני לבין הפעילות הביוכימית.
בעוד שהשיטה היא חסונה וניתנת לשחזור בקלות, הצלחת הרכיב מחדש (reconstitution) תלויה באופטימיזציה מדויקת של הרכב הליפידים, ריכוז הדטרגנט, יחס החלבון-ליפיד, ואיטום יעיל של הממברנה כדי לשמר את היציבות והפעילות של הסופר-קומפלקס.
המטרה הכוללת של שיטה זו היא לאפשר ניתוח מבני ותפקודי משולב של SCs נשימתיים תחת תנאי ממברנה מוגדרים. גישה זו נותנת מענה למגבלות מרכזיות של מערכות מבוססות דטרגנט על ידי השבת ה-SCs לשכבה ליפידית כפולה אטומה, שיכולה לתמוך ביצירת פוטנציאל ממברנה ובאינטראקציות חלבון–ליפיד רלוונטיות פיזיולוגית. בנוסף, המערכת מאפשרת שליטה מדויקת בהרכב הליפידים, בקו-פקטורים ובתוכן החלבוני, מה שהופך אותה למתאימה מאוד לבדיקה שיטתית של האופן שבו תכונות הממברנה משפיעות על יציבות ה-SCs ועל פעילותם. בהשוואה להכנות המומסות בדטרגנט או לגישות in situ, שיטה זו מציעה יתרון מובהק של שילוב בין בדיקות תפקודיות, כגון צריכת חמצן המונעת על ידי NADH, לבין ניתוח מבני מבוסס cryo-EM, ובכך מאפשרת קורלציות מבנה–תפקוד שקשה להשיג באמצעות מערכות אחרות.
פרוטוקול
ממברנות מיטוכונדריה מלב חזיר בודדו מרקמת לב שנרכשה מסחרית והופקה מבעלי חיים ששוחטו למאכל אדם. לא נעשה שימוש בבעלי חיים חיים במיוחד עבור פרוטוקול זה. נקבע כי השימוש בחומר זה פטור מאישור אתי לניסויים בבעלי חיים מכיוון שהרקמה הושגה כתוצר לוואי מ בעלי חיים ששוחטו למאכל אדם.
1. ניקוי של סופר-קומפלקס מיטוכונדריאלי SC I+III2/SC I+III2+IV מממברנות שטופות של מיטוכונדריה מלב חזיר
- הפשיתו 40 mg (4 mL) של ממברנות מיטוכונדריאליות שטופות המוכנסות לאליקוטיים של 10 mg/mL (השטיפה של הממברנות בוצעה כפי שדווח בעבר24,25).
- דללו את הממברנות ב-4 mL של Buffer MX (30 mM HEPES, pH 7.7, 150 mM potassium acetate, 10% glycerol, 1 mM EDTA, 0.002% (w/v) phenylmethylsulfonyl fluoride, 0.1% (w/v) CHAPS (3-[(3-cholamidopropyl)dimethylammonio]-1-propanesulfonate), 1 mM potassium ferricyanide). הוסיפו 8 mL של 2% (w/v) digitonin ב-Buffer MX (160 mg digitonin ב-8 mL; יחס סופי של 4:1, (mg digitonin: mg total membrane protein). הנפח הסופי הוא 16 mL.
- בצעו הומוגניזציה ידנית באמצעות הומוגניזטור דונס (Dounce homogenizer) (50 תנועות), תוך הקפדה על מניעת היווצרות בועות. הדגירו (בסיבוב/tumble) למשך שעה אחת ב-4 °C.
- סובבו את ההומוגנאט ב-16,000 × g, ב-4 °C למשך 30 דקות. אספו את הסופרנאט.
- רכזו את הסופרנאט לנפח של 1 mL באמצעות מרכז סינון צנטריפוגלי עם cut-off של 100 kDa ב-3000 × g, ב-4 °C. הרכזו במחזורים של 10 דקות, תוך ערבוב יסודי בין הסיבובים, עד להגעה לנפח הרצוי (דגימות נוטות לצבור אגרגטים אם אינן מסוכסכות מחדש בין מחזורי הסיבוב, עקב ריכוז מקומי מוגבר של הדטרגנט ליד המסנן).
- חלקו את הדגימה המרוכזת לארבעה אליקוטיים של 250 µL.
- השילו את עמודת הכרומטוגרפיה של הפרדה לפי גודל (column volume: 24 mL) עם בופר לכרומטוגרפיה של הפרדה לפי גודל (SEC buffer; 30 mM HEPES pH 7.8, 150 mM potassium acetate, 1 mM EDTA, 0.005% glycocide detergent) למשך 48 mL (2 נפחי עמודה).
- הגדירו את תוכנית הכרומטוגרפיה לאיסוף פרקציות של 1 mL החל מנפח אלוציה של 6 mL ועד לנפח אלוציה של 24 mL. מזקו אליקוט של 250 µL (משלב 1.6) על שרף לכרומטוגרפיה של הפרדה לפי גודל בנפח 24 mL. השתמשו בעמודה שהושלו מראש עם בופר לכרומטוגרפיה של הפרדה לפי גודל (משלב 1.7). אספו את הפרקציות מהפרקציונטור לפני תחילת ההרצה הבאה.
- חזרו על שלבים 1.7 ו-1.8 עבור שאר האליקוטיים המרוכזים משלב 1.6.
- הריצו 10 µL מכל פרקציה מהרצות ה-SEC מעורבבים עם 5 µL של צבע טעינה ל-blue-native polyacrylamide gel electrophoresis (BN-PAGE) בגרדיאנט של 3%–12% אקרילאמיד, ובצעו בדיקת פעילות in-gel של NADH/Nitro tetrazolium blue chloride CI26 כדי לבדוק את הפרקציות לפעילות CI.
הערה: Respiratory SCs נאלואים ממצע סינון ג'ל אגרוז צולב בנפח 24 mL בנפח אלוציה של כ-11.5 mL. - אגדו את הפרקציות המראות את הפעילות המקסימלית של CI עם MW גבוה בבדיקת פעילות CI in-gel. רכזו את הדגימה כפי שמתואר בסעיף 1.5 לעיל.
הערה: ניתן לאחסן SCs מרוכזים בדטרגנט glycoside glyco-diosgenin GDN עם 30% (v/v) glycerol בריכוז סופי של כ-10 mg/mL ב-Liquid N2. 40 mg של קומפלקס מיטוכונדריאלי שטוף הניבו 3.4 mg של חלבון כולל על בסיס בדיקת BCA.
2. הכנת תערובת ליפידים
הערה: שונה מפרוטוקולים שדווחו בעבר27,28. כלורופורם הוא רעיל, נדיף וחשוד כחומר מסרטן. יש לטפל בו אך ורק במכנס כימיים מאושר עם ציוד מגן אישי (PPE) מתאים. פנטאן הוא דליק מאוד. יש להרחיקו ממקורות הצתה. יש לטפל בו אך ורק במכנס כימיים מאושר עם ציוד מגן אישי (PPE) מתאים. יש להשליך פסולת של ממסים אורגניים למכלי פסולת לממסים מחולגנים/לא-מחולגנים מאושרים בהתאם למדיניות הבטיחות, הבריאות והסביבה (EH&S) של המוסד.
- בעבודה תחת מ常用ט, הכין בנפרד תמיסות סטוק בריכוז 25 mg/mL של POPC (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine), POPE (1-palmitoyl-2-oleoyl-sn-glycero-3-phosphoethanolamine), ו-CL (cardiolipin: 1,3-bis(sn-3’-phosphatidyl)-sn-glycerol; מרקמת לב של בקר) בתוך כלורופורם.
- הכן תמיסת CoQ10 בריכוז 10 mM בתוך כלורופורם. עבור 25 mg של תערובת ליפידים כוללת, הוסף למבחנה מזכוכית בנפח 13 mL מתמיסות הסטוק: 0.4 mL (10 mg) של POPC, 0.4 mL (10 mg) של POPE, 0.2 mL (5 mg) של CL, ו-50 µL של CoQ10 בריכוז 10 mM (סה"כ 500 nmol CoQ10 (20 nmol CoQ10/mg ליפיד)). היחס הסופי לפי משקל של POPC:POPE:CL הוא 2:2:1.
- ייבש את התערובת תחת זרם של גז אינרטי (ארגון או חנקן) כדי להסיר את הכלורופורם, תוך סיבוב עדין של המבחנה ליצירת שכבה דקה של תערובת הליפידים לאורך דפנות המבחנה. ייבש תחת זרם קבוע של גז אינרטי למשך 10 min.
- המס שוב את שכבת הליפידים המיובשת ב-1 mL של פנטאן וחזור על שלב 2.3, כדי לסייע בהסרת שאריות הכלורופורם.
- הדגר את מבחנת הליפידים המיובשת בתוך דסיקטור ואקום בטמפרטורת החדר למשך לילה, כדי להסיר את הממסים לחלוטין.
- הוסף 5 mL של באפר פרוטליפוזום (PLB; 10 mM MOPS pH 7.4, 150 mM KCl) כדי להמיס מחדש (rehydrate) את תערובת הליפידים, אטום את המבחנה היטב למניעת דליפה, וערבב בעזרת וורטקס בעדינות עד שהליפידים מומסים לחלוטין (הליפידים המיובשים אינם נראים יותר על דפנות המבחנה).
- הסר את האטם, מלא את המבחנה בגז אינרטי (ארגון או חנקן), אטום שוב את המבחנה, והדגר בטמפרטורת החדר למשך 1 h. לאחר הדגרה של 1 h, חלק את תערובת הליפידים לאליקוטים של 300 µL ואחסן ב-−20 °C.
הערה: תערובת ה-POPC:POPE:cardiolipin (2:2:1) נבחרה על בסיס אופטימיזציה אמפירית ומכיוון ש-PE ו-cardiolipin הם מרכיבים עיקריים של הממברנה הפנימית של המיטוכונדריה; עם זאת, ניתן להתאים את הפרוטוקול בקלות לבדיקת הרכבי ליפידים חלופיים.
3. שחזור של SCs מיטוכונדריאליים לתוך ליפוזומים
- הפשיר על קרח מנות SC המאוחסנות ב-Liquid N 2 (שלב 1.12). בצע החלפת באפר להסרת גליצרול מהדגימה על ידי סספנסיה מחדש של הדגימה בבאפר SEC. רכז את הדגימה באמצעות מסנני סנטריפוגה עם cut-off של 100 kDa במהירות 3000 × g בטמפרטורה של 4 °C. בין סבבי הריכוז (~כל 5 דקות), המשך לבצע החלפת באפר על ידי סספנסיה מחדש של הדגימה בבאפר SEC.
- בדוק את הריכוז הסופי של ה-SC באמצעות בדיקת BCA (ערכה לבדיקת חלבונים המבוססת על חומצה ביצינכונינית).
- הפשיר מנה של 300 µL מתערובת הליפידים שהוכנה בשלב 2.7 והעבר אותה דרך אקסטרודר המצויד בממברנת פוליקרבונט של 100 nm למשך שישה מחזורים בטמפרטורת החדר (מחזור אחד כולל העברת תערובת הליפידים מהמזרק השמאלי לימני וחזרה). עם סיום מחזורי האקסטרוזיה, אסוף את הליפוזומים בנפח 100 nm מהמזרק שנמצא בצד הנגדי לצד ההתחלתי. לחלופין, ניתן להפיק ליפוזומים באמצעות סוניקציה.
- הוסף 9 µL של דטרגנט בריכוז 20% (w/v) (ריכוז סופי של 0.6% w/v) ל-250 µL של תערובת הליפידים שעברה אקסטרוזיה במבחנה נפרדת.
הערה: ניתן לנסות דטרגנטים שונים. Sodium cholate, דטרגנט מלח מרה אניוני, הניב את התוצאות הטובות ביותר בניסויים אלו. - ערבב על ידי היפוך והדגר ב-4 °C למשך 30 דקות.
- הוסף לתערובת 120 µg (או יותר) של mitochondrial SC ו-3 µL של 10 mM cytochrome c (ריכוז סופי של 100 µM). השלם את הנפח ל-300 µL באמצעות PLB. יחס הליפיד:חלבון הסופי הוא בערך 10:1 (w:w). כביקורת נוספת, הכן במקביל ליפוזומים ריקים על ידי הוספת באפר SEC (30 mM HEPES, pH 7.8, 150 mM potassium acetate, 1 mM EDTA, 0.005% glycoside detergent) לתערובת הליפיד-דטרגנט במקום mitochondrial SCs ו-cytochrome c.
- ערבב על ידי היפוך והדגר ב-4 °C למשך 30 דקות.
- שטוף עמודת ספין להסרת מלחים (desalting spin column) ארוזה מראש המכילה שרף G-25 עם באפר PLB ארבע פעמים באמצעות זרימה בכבידה. לאחר מכן, בצע שטיפה בסנטריפוגה של העמודה במהירות 1,000 × g למשך 2 דקות.
- הוסף את דגימת הפרוטליפוזום לעמודת הספין להסרת מלחים עם שרף G-25 שנטה וסבב את העמודה במהירות 1,000 × g ב-4 °C למשך 2 דקות כדי להסיר את הדטרגנט. אסוף את האלואנט.
הערה: ליפוזומים שהוכנו באקסטרוזיה הראו התפלגות גדלים אחידה יותר מאלו שהופקו בסוניקציה. אין לסובב את עמודת הספין להסרת מלחים הארוזה מראש למשך זמן ארוך מההמלצת היצרן, כדי למנוע זיהום של הדגימה בדטרגנט. הפרוטליפוזומים אוחסרו ב-4 °C ובדרך כלל נעשה בהם שימוש בתוך 36 שעות כדי למזער אובדן פעילות פוטנציאלי ולשמר את שלמות הסופר-קומפלקסים.
4. בדיקת ציפה של ליפידים (Lipid flotation assay)29
- הכינו תמיסות של 27% ו-7% (w/v) סוכרוז ב-PLB. הכינו גרדיאנט מדורג על ידי שכבה של 1.5 mL סוכרוז 27% ו-0.9 mL סוכרוז 7% במבחנת צנטריפוגה של 3.5 mL.
- הניחו בעדינות שכבה של 300 µL פרוטאו-ליפוזומים (משלב 3.9) המכילים SC על גרדיאנט הסוכרוז. סובבו את הגרדיאנטים בצנטריפוגה ב-100,000 × g ברוטור בעל זווית קבועה למשך 2 h ב-4 °C.
- אספו בזהירות (נסו להימנע מערבוב) תשעה פראקציות של 300 µL (או 10 פראקציות של 270 µL) מלמעלה למטה. השביו מחדש את המשקע, אם קיים, בפראקציה האחרונה ואספו אותה כפראקציה 9 או 10. כל SC שלא עבר רקונסטיטוציה אמור להצטבר בפראקציה 9 או 10.
הערה: בדיקת הציפה (flotation assay) מסייעת להפריד פרוטאו-ליפוזומים שעברו רקונסטיטוציה מליפוזומים ריקים ומקומפלקסים של חלבונים שלא עברו רקונסטיטוציה. היא משמשת לאופטימיזציה של תהליך הרקונסטיטוציה.
5. בדיקת פעילות פריציאניד ספקטרוסקופית של CI ובדיקת פעילות CI בג'ל
- הכינו את הכמות הדרושה של באפר תגובה פריציאניד (FRB; 20 mM Tris HCl, pH 7.4, 50 mM NaCl, 0.1% w/v 3-[(3-cholamidopropyl)dimethylammonio]-1-propanesulfonate (CHAPS), 1 mM potassium ferricyanide).
- העבירו מנה של 990 µL מבאפר התגובה לקובית (cuvette) של 1 mL. הוסיפו לקובית 5 µL מהדגימה (מכל פראקציית גרדיאנט), ולאחר מכן הוסיפו לתגובה 5 µL של 20 mM NADH (ריכוז סופי 100 µM). אטמו את הקובית בנייר דבק שקוף וערבבו על ידי היפוך.
- עקבו אחר קצב דעיכת הבליעה ב-340 nm בטמפרטורה של 25 °C בספקטרומטר. הדעיכה בבליעה ב-340 nm מעידה על חמצון של NADH. חזרו על הפעולה עבור כל הפראקציות בשלישייה. השתמשו ב-5 µL של PLB במקום הדגימה כדי לרשום את הבלנק (blank).
- חשבו את קצב חמצון ה-NADH לאחר הפחתת הבלנק ושרטטו את הפעילות הכוללת של כל אחת מהפראקציות.
הערה: לחלופין, ניתן לבצע את הניסוי בלוחית של 96 בארות. - אספו את הפראקציות בעלות הפעילות הכוללת המקסימלית (הימנעו מפראקציות בתחתית המבחנה המכילות פעילות, שכן אלו תואמות לחלבון שלא עבר רקונסטיטוציה). השלימו את נפח הפראקציות שנאספו לנפח כולל של 20 mL עם PLB כדי לדלל את הסוכרוז.
- סובבו את הדגימות ב-150,000 × g, ב-4 °C למשך שעה אחת ברוטור בזווית קבועה. השליכו את העלייה (supernatant) והשעיקו מחדש את המשקע ב-200 µL של PLB.
- ערבבו 25 µL מהמשקע שהשועק מחדש מהשלב הקודם עם 25 µL של 2% w/v digitonin ב-PLB והדגירו (בסיבוב/tumble) ב-4 °C למשך שעה אחת.
- סובבו למטה את החלבונים שלא הוצאו ב-16,000 × g למשך 20 דקות. אספו את העלייה.
- הוסיפו 10 µL של צבע טעינה ל-BN-PAGE ל-30 µL מהעלייה וטענו ל-BN-PAGE בגרדיאנט של 3%–12%. הריצו שני ג'לים כדי לבצע בדיקות פעילות בתוך הג'ל (in-gel activity assays) עבור CI ו-CIV26.
- הריצו את הג'ל ב-150 V למשך 30 דקות עם באפר BN-PAGE כהה (25 mM Tris, 0.192 g Glycine, 200 mg Coomassie blue). החליפו את הבאפר הכחול הכהה בבאפר כחול בהיר (25 mM Tris, pH 8.3, 0.192 g Glycine, 20 mg Coomassie blue) והריצו למשך שעתיים נוספות ב-200 V.
- בסיום ההרצה, העבירו את הג'לים למכל מתאים ובצעו בדיקות פעילות בתוך הג'ל עבור CI ו-CIV26.
הערה: עבור מחקרים מבניים ותפקודיים של קומפלקסים שעברו רקונסטיטוציה בליפוזומים, השתמשו בפרוטליפוזומים שנותרו מהשעייה מחדש בשלב 5.6. ברגע שהרקונסטיטוציה עברה אופטימיזציה מלאה, ניתן לדלג על שלבים 4 ו-5 ולהשתמש בפרוטליפוזומים שעברו רקונסטיטוציה ישירות משלב 3.
6. בדיקת כיבוי פלואורסצנציה של ACMA למדידת שלמות הממברנה של הפרוטאו-ליפוזומים ששוחזרו29
- הכינו את הכמות הדרושה של באפר תגובה עבור ACMA (9-amino-6-chloro-2-methoxyacridine) (10 mM MOPS pH 7.4, 15 mM KCl, 4 µM ACMA, 0.5 mg/mL bovine serum albumin (BSA), 2 mM 2-Mercaptoethanol).
- העבירו מנבובת 930 µL של באפר תגובה לקובטה של 1 mL. הוסיפו לקובטה 50 µL של הפרוטאו ליפוזומים המשוחזרים, אטמו את הקובטה וערבבו על ידי היפוך. הדגרירו הרחק מאור למשך 8 min.
- הגדירו את פרמטרי הספקטרומטר כך ש: אורך גל עירור (Excitation wavelength) יהיה 410 nm, ואורך גל פליטה (Emission wavelength) יהיה 490 nm.
- בסיום ההדגירה, ערבבו שוב את הקובטה על ידי היפוך ומדדו את הפלואורסצנציה באמצעות הספקטרומטר בטמפרטורת החדר למשך 8 min.
- הוסיפו לקובטה 4 µL של 20 µM valinomycin (ריכוז סופי של 80 nM), ערבבו על ידי היפוך ומדדו למשך 8 min.
- הוסיפו לקובטה 6 µL של 1 mM CCCP (carbonyl cyanide m-chlorophenyl hydrazone) (ריכוז סופי של 6 µM), ערבבו על ידי היפוך ומדדו למשך 8 min.
- כדי ליצור בקרת וסיקולות ריקות, חזרו על שלבים 6.2–6.6 אך החליפו את הפרוטאו ליפוזומים המשוחזרים ב"ליפוזומים ריקים". ליפוזומים ריקים מיוצרים באותם שלבים של הפרוטאו ליפוזומים המשוחזרים, אך עם באפר SEC במקום הוספת SCs במהלך השחזור (שלב 3.6).
- חזרו על המדידה בשלישייה הן עבור הפרוטאו ליפוזומים המשוחזרים והן עבור הליפוזומים הריקים, ושרטטו את הפלואורסצנציה היחסית שלהם לאורך זמן.
הערה: נתונים של פרוטאו ליפוזומים משוחזרים או ליפוזומים ריקים ננרמלים לפי (Fi − Fmin)/(Fmax−Fmin), כאשר Fmax הוא ערך הפלואורסצנציה הבסיסי ההתחלתי של אותה דגימה ו-Fmin הוא ערך הבסיס הנמוך ביותר של אותה דגימה לאחר הוספת CCCP.
אזהרה: CCCP הוא מחלבל (uncoupler) מיטוכונדריאל רעיל ויש לטפל בו באמצעות כפפות במנדף כימיים.
7. מדידות רספירומטריה של צריכת חמצן להערכת התפקוד של SCs ששוחלפו30.
הערה: קצב צריכת החמצן נמדד באמצעות מערכת אלקטרודת חמצן מסוג Clark. הבדיקות התפקודיות של ה-SCs השוחללים מבוצעות ישירות על התסננת (eluate) מעמודת ההסמכה (שלב 3.9).
- הגדירו את מכשיר מערכת אלקטרודת החמצן בהתאם להוראות היצרן ופתחו את תוכנת הבקרה של המכשיר. הוסיפו 2 mL של מים אולטרה-טהורים לתא המדידה.
- קבעו את מהירות הערבוב עד שגרף ריכוז החמצן יישאר ללא שינוי עם הגברת מהירות הערבוב (התחילו ב-10, והגבירו במדרגות של 10). הסירו את מי ה-MQ והוסיפו מים מחומצנים (מי MQ בבקבוק שננערה בעוצמה).
- לחצו על Calibrate > Liquid-phase calibration > Air-saturated water והמתינו להתייצבות הכיול (קצב של 0 nmol לדקה). באמצעות שפכטל קטן, הוסיפו מספר גבישים (4–6) של sodium dithionite לכלי התגובה כדי להגיע לרמת חמצן אפס בתא.
- המתינו עד שהאות יגיע למישור (plateau) לפני ההמשך. שמרו את הכיול ונקו את תא התגובה באמצעות 5 × 1 mL של 70% ethanol, 5 x 1 mL של 0.1 mM EDTA, 5 × 1 mL של מי MQ, ו-5 × 1 mL של באפר תגובה לאוקסיגרף (ORB; 150 mM KCl, 50 mM MOPS pH 7.4, 5 mM MgCl2, 5 mM KH2PO4, 0.02 mM EGTA, 0.5 mg/mL BSA).
- הוסיפו 2 mL ORB, לחצו על כפתור ה-“start read” בתוכנה, והמתינו להתייצבות הגרף. תוך כדי הוספת הפרוטליפוזומים (הדגימה) לתא התגובה, סמנו את הגרף בתוכנה כדי לציין את הוספת הדגימה.
הערה: ריכוז החלבון בדגימת הפרוטליפוזומים מוערך על סמך סך החלבון שהתווסף לליפוזומים. יחס חלבון:ליפיד של 1:12 וריכוז סופי של 50 µg/mL חלבון בתא מערכת אלקטרודת החמצן (2 mL) הניבו את התוצאות הטובות ביותר. תנובת הפרוטליפוזומים המדויקת לא נמדדה. - לאחר שהקריאה של מערכת אלקטרודת החמצן מתייצבת, הוסיפו NADH לתא התגובה ובמקביל סמנו את הגרף בתוכנה כדי לציין את הוספת ה-NADH. המשיכו בקריאה למשך 5 min.
- הוסיפו CCCP, סמנו את ההוספה בתוכנה, והמשיכו בקריאה למשך 5 min.
- הוסיפו מעכב (למשל, CI inhibitor (Piericidin A) או CIII2 inhibitor (Myxothiazol) או CIV inhibitor (NaN3)) וסמנו את הגרף בתוכנה, קראו למשך 2 min, ולאחר מכן הפסיקו את הקריאה.
- שמרו את הגרף ונקו את תא התגובה עם 5 x 1 mL 70% ethanol, 5 × 1 mL 0.1 mM EDTA, 7 × 1 mL מי MQ, ו-5 × 1 mL ORB לפני ביצוע מדידה נוספת.
- כדי לתקן את הנתונים עבור קצב הרקע, חשבו את קצב הרקע, כלומר, השיפוע של הקריאה לפני הוספת NADH, ובצעו אקסטרפולציה ליניארית של קצב זה לאורך מהלך הזמן של המדידה כדי לחשב [O2] רקע צפוי לכל נקודת זמן. לאחר מכן, החסירו את ערך ה-[O2] של הרקע שהוצא באקסטרפולציה מערך ה-[O2] שנמדד לכל נקודת זמן.
- חשבו את קצבי צריכת החמצן (OCRs) כשיפוע של מדידות ריכוז ה-[O2] המתוקנות לרקע לאחר הוספת כל ריאגנט.
- כדי לחשב את הקצבים ביחס ל-OCR לאחר הוספת NADH, עבור כל עקבה בודדת, חלקו כל OCR שנמדד (למשל, OCR לאחר הוספת NADH, CCCP ומעכב, בהתאמה) ב-OCR שנמדד לאחר הוספת NADH.
הערה: זהירות: Sodium dithionite הוא חומר מחזר חזק ועשוי להגיב בעוצמה עם מחמצנים או עם לחות. יש לטפל במחומר עם כפפות. פסולת המכילה מעכבים יש להשליכה כפסולת כימית מסוכנת בהתאם להנחיות המוסדיות.
8. הערכת גודל הליפוזומים המשוחזרים באמצעות פיזור אור דינמי
- הפעל את מכשיר פיזור האור הדינמי (DLS) והמת כ-30 דקות לייצוב הלייזר.
- הפעל את תוכנת הרכישה של המכשיר וסגור קבצים קודמים.
- סנן את הפרוטאוליפוזומים (0.2 μm) כדי להסיר חלקיקים.
- העבר 70 µL של הפרוטאוליפוזומים לקובט נקייה, תוך הימנעות מטביעות אצבעות או סימנים.
- הכנס את הקובט למכשיר וסגור את המכסה היטב.
- צור קובץ חדש ובחר Manual Measurement > Size.
- הגדר את הטמפרטורה ל-25 °C והשאר את מדד הנחיתה (attenuation index) במצב אוטומטי.
- הגדר את מאפייני המפיץ (צמיגות ומקדם שבירה; לדוגמה, RI = 1.330 עבור מים/בופר).
- הגדר את פרמטרי הרכישה (משך זמן אוטומטי, כ-3 מדידות, עיבוד מסוג General Purpose).
- התחל את המדידה ועקב אחר הגודל, מדד הפולידיספרסיות (PDI) וקצב הספירה (יעד של כ-100–500 kcps).
- נתח את התוצאות: בדוק את התפלגות הגדלים (עוצמה/נפח), את ה-PDI (ערך של <0.3 מקובל) ואת איכות האוטו-קורלציה (דעיכה חלקה, קו בסיס יציב); שמור את הנתונים.
9. הכנת רשתות וסינון במיקרוסקופיה אלקטרונית קריוגנית
- השתמשו בדגימת הפרוטאו-ליפוזומים משלב 5.11 (או משלב 3.9 אם שלבים 4 ו-5 הושמטו) להכנת רשתות EM. רכזו את הפרוטאו-ליפוזומים במידת הצורך על ידי חזרה על שלב 5.6 והשעיה מחדש בנפח קטן יותר של PLB.
- בצעו פריקה זוהרת (Glow-discharge) לרשתות נחושת 300-mesh מצופות פחמן מחורר למשך 90 s בזרם של 20 mA תוך שימוש באוויר במערכת ניקוי מסוג glow-discharge.
- הגדירו מערכת הקפאה מהירה אוטומטית (automated plunge freezer) להקפאה ב-95% לחות ובטמפרטורה של 15 °C עם הפרמטרים הבאים: זמן ספיגה (blot time) של 10 s, כוח ספיגה (blot force) של −8, זמן המתנה (wait time) של 10 s וזמן ניקוז (drain time) של 0.
- חברו את הפינצטה עם הרשת שעברה פריקה זוהרת למערכת ההקפאה המהירה.
- הוסיפו 4.0 µL מדגימת הפרוטאו-ליפוזומים לרשת שעברה פריקה זוהרת במכשיר הקפאה אוטומטי.
- הדגירו את הרשתות למשך 10 s לפני ספיגה למשך 10 s והקפאה מהירה באתאן נוזלי. העבירו בזהירות את הרשתות לקופסת הרשתות בתא N2 נוזלי, ולאחר מכן למכל אחסון (dewar) של N2 נוזלי.
- טענו את הרשתות הקפואות ובצעו סריקה במיקרוסקופ אלקטרונים חודר (transmission electron microscope) עם טוען דגימות קריוגני. נעשה שימוש במיקרוסקופ אלקטרונים חודר עם גלאי אלקטרונים ישיר.
- הגדירו את המיקרוסקופ בהתאם להוראות היצרן וסרקו את הרשתות לאיתור פרוטאו-ליפוזומים ששוחללו. שמרו את התמונות.
הערה: זהירות: אתאן נוזלי הוא דליק מאוד וקריוגני; טפלו בו באמצעות ציוד מגן אישי (PPE) מתאים ו הרחיקו אותו ממקורות הצתה כדי למנוע דליקה וכוויות קור. חנקן נוזלי הוא קריוגני ועלול לגרום לכוויות קור חמורות ולהדחיית חמצן. טפלו בו באמצעות ציוד מגן קריוגני מתאים והשתמשו בו רק באזורים מאווררים היטב.
תוצאות
באמצעות פרוטוקול זה, זיהינו את תנאי הרכבה מחדש (reconstitution) האופטימליים עבור סופר-קומפלקסים (SCs) מיטוכונדריאליים שבודדו ממיטוכונדריות של לב חזיר (Figure 1A,B). פרוטוקול מדרג הסוכרוז (sucrose step-gradient) מפריד ביעילות פרוטוליפוזומים שהורכבו מחדש משלפוחיות ריקות ומחלבונים שלא נטמעו, מה שמאפשר בדיקה מהירה ואופטימיזציה של התנאים. התוצאות המייצגות ב-Figure 2 מראות מדרג עם הדגימה שהחלה לפני ואחרי סנטריפוגציה. בנוסף, ביצענו אופטימיזציה לדטרגנט המשמש להרכבה מחדש של ה-SC הנשימתי לתוך ליפוזומים. ארבעה דטרגנטים שונים — דטרגנט מלח מרה אניוני, CHAPS, דיגיטונין ודטרגנט גליקוזיד — שימשו בנפרד להרכבה מחדש עם ה-SCs. פעילות CI הכוללת בפרקציות נמדדה באמצעות בדיקת NADH-ferricyanide oxidoreduction עבור כל דטרגנט שנבדק (Figure 3A–D). עבור הרכבות מחדש מוצלחות, נצפתה פעילות מקסימלית של CI בפרקציות בממשק שבין שני ריכוזי הסוכרוז (27% w/v סוכרוז ו-7% w/v סוכרוז). בולט כי פעילות מינימלית מזוהה בפרקציה #10 עבור דטרגנט מלח מרה אניוני ו-CHAPS, בעוד שפרקציה #10 עבור דיגיטונין ודטרגנט גליקוזיד מראה פעילות משמעותית, מה שמעיד על כך שדיגיטונין ודטרגנט גליקוזיד אינם מרכיבים מחדש ביעילות את הסופר-קומפלקסים לתוך הליפוזומים. דטרגנט מלח מרה אניוני שימש לכל ההרכבות מחדש שבוצעו לאחר מכן.
בדיקת פעילות in-gel של CI ו-CIV שבוצעה על ג'ל אלקטרופורזה של פוליאקרילאמיד בשיטת blue-native של פרוטוליפוזומים מסוג POPC:POPE:CL (2:2:1) שהוצאו באמצעות דיגיטונין, מדגימה את הכמויות היחסיות של SC ושל קומפלקסים בודדים של ה-ETC לאחר הרכבה מחדש (איור 4). התוצאות מעידות כי האינטראקציה בין CI ל-CIII2 נשמרה במידה רבה בפרוטוליפוזומים לאחר חילוץ מחדש עם דיגיטונין ו-BN-PAGE. למרות שקיימה פעילות מסוימת של CIV בפס של הסופר-קומפלקס, נצפה אות חזק גם במשקל מולקולרי נמוך יותר התואם ל-CIV לבדו, מה שמעיד על התפרקות. דליפות הממברנה של הליפוזומים שהורכבו מחדש נמדדו באמצעות בדיקת כיבוי פלואורסצנציה של ACMA, אשר הראתה כי הפרוטוליפוזומים לא היו דליפים באופן משמעותי לפרוטונים (איור 5A,B). גודל הליפוזומים שהורכבו מחדש נאמד באמצעות DLS, מה שהראה כי אקסטרוזיה לפני ההרכבה מחדש מובילה להתפלגות גדלי פרוטוליפוזומים סופית של 82.9 ± 0.8 nm קוטר עבור וסיקולות ריקות ו-10.6 ± 0.4 nm עבור RSPs של סופר-קומפלקס שהורכבו מחדש (איור 6). צריכת חמצן על ידי הפרוטוליפוזומים שימשה להערכת תפקוד ה-SC, וחשפה צריכת חמצן מונעת-NADH רגישה למעכבים באופן ברור (איור 7A). שרטוט ה-OCRs ביחס ל-OCR לאחר הוספת NADH מעיד ישירות על דרגת הצימוד בתוך ה-RSPs, כלומר, ה-OCR עולה פי ~1.5 לאחר הוספת CCCP ביחס להוספת NADH בלבד (איור 7B). רשתות ה-Cryo-EM שנסרקו אפשרו ויזואליזציה של ה-SCs בממברנה של הפרוטוליפוזום, מה שמאשר הרכבה מחדש מוצלחת (איור 8A–I).
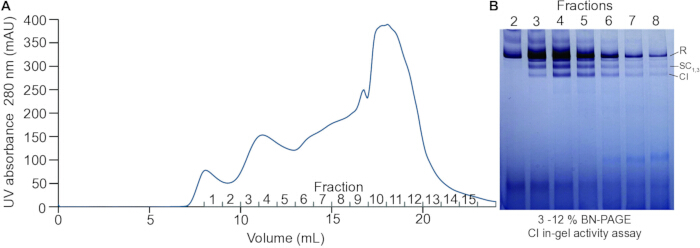
איור 1: בידוד ואפיון של סופר-קומפלקסים המומסים בדטרגנט ממיטוכונדריה של לב חזיר. (Aכרומטוגרמה מייצגת של טיהור באמצעות כרומטוגרפיה של הדרכה מהגודל (SEC) של קומפלקסים מממברנה מיטוכונדריאלית של חזיר שחולצו באמצעות דיגיטונין.B) אלקטרופורזה בג'ל פוליאקרילאמיד עם תאימות למטען טבעי (BN-PAGE) של פראקציות מ- A ש शीוצואו על ידי צביעת פעילות בתוך הג'ל (in-gel activity staining) של CI. אנא לחץ כאן כדי להציג גרסה מורחבת של איור זה.
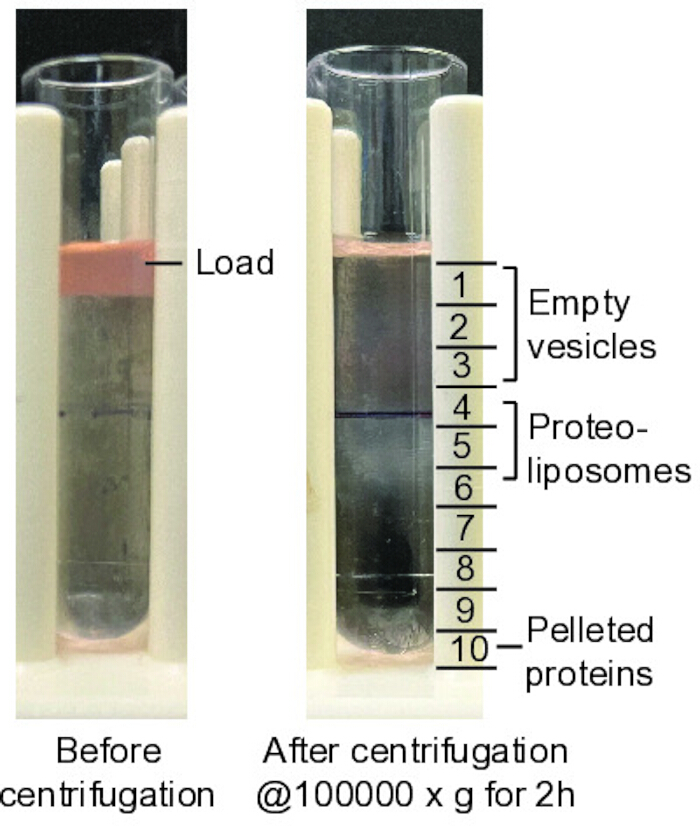
איור 2מדרגי סוכרוז עם פרוטאו-ליפוזומים. לפני סנטריפוגציה (שמאל), לאחר סנטריפוגציה (ימין) ב-10,0 × g למשך שעתיים באולטרסנטריפוגה. דגימת הפרוטאו-ליפוזומים שהועמסה על הגרדיאנט מופרדת לוויקוצאות ריקות, לפרוטאו-ליפוזומים ולחלבון מאגרגט בתחתית. גרדיאנט זה מופרד לאחר מכן לפרקציות לצורך אפיון נוסף כמתואר. ההיקף המשוער של כל פרקציה מסומן ומסווג. אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
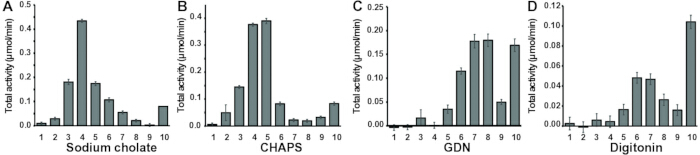
איור 3: בדיקת ציפה להערכת יעילות השחזור בדטרגנטים שוניםפעילות CI NADH-ferricyanide על הפראקציות ממעבר הgradient של סוכרוז לאחר הרכבה מחדש עם (א) דטרגנט מלח מרה אניוני, (ב) 3-[(3-cholamidopropyl)dimethylammonio]-1-propanesulfonate (CHAPS) (0.6% (משקל/נפח)), (ג) דיגיטונין (0.6% משקל/נפח), (ד) חומר דטרגנט גליקוזידי (GDN) (0.6% (משקל/נפח)). פרקציה #10 מתקבל על ידי השעיה מחדש של כל משקע בפרקציה האחרונה. פעילות בפרקציה #10 מעיד על כך שהחלבונים לא עברו רקונוסטיטוציה (reconstitution). n = 3 וסטיות התקן מוצגות על ידי פסי השגיאה (SD = standard deviation). אנא לחצו כאן כדי לצפות בגרסה מוגדלת של איור זה.
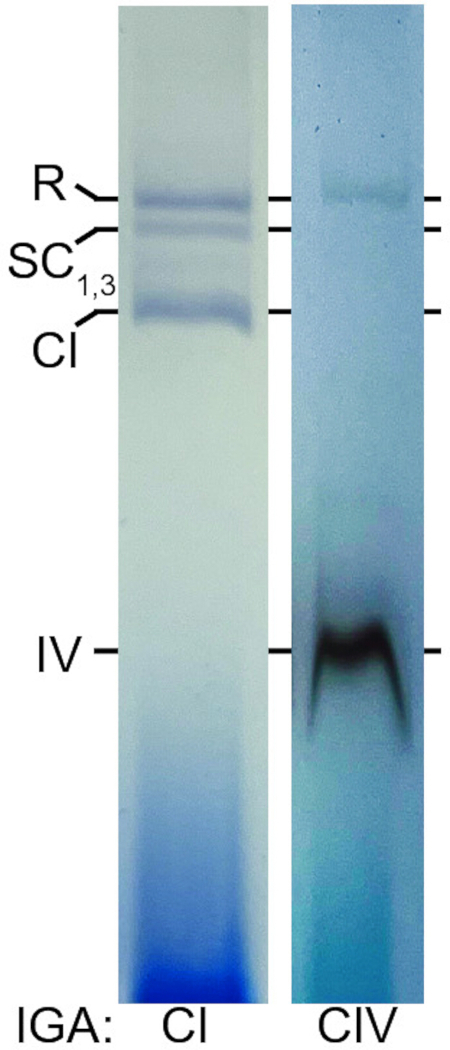
איור 4: בדיקת פעילות בתוך ג'ל (In-gel activity assay) על פרוטאו-ליפוזומים שהוצאו באמצעות דיגיטונין והורצו על BN-PAGE בריכוז של 3%–12%. בדיקת פעילות בתוך ג'ל (in-gel activity assay) של CI (שמאלה) ו-CIV (ימינה). R = רספירסום (SC I+III)2+IV), תת-עורי (SC)1,3 (SC I+III2), IGA CI = (בדיקת פעילות בתוך ג'ל של CI); IGA = בדיקת פעילות בתוך ג'ל CIV = (בדיקת פעילות בתוך ג'ל של CIV). אנא לחצו כאן כדי לצפות בגרסה גדולה יותר של איור זה.
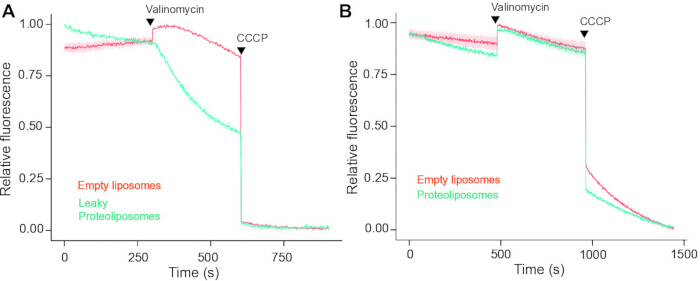
איור 5בדיקת כיבוי פלואורסצנציה של ACMA לגילוי דליפת פרוטונים בפרוטאוליפוזומים משוחזריםבאמצעות צבע רגיש ל-pH (ACMA), הושווה ה-pH הפנימי של פרוטליפוזומים משוחזרים (בצבע תכלת) לזה של ליפוזומים ריקים (בצבע כתום) לאחר הוספה עקיפה של Valinomycin ו-CCCP. מוצגים עקומות פלואורסצנציית ACMA מייצגות שהתקבלו מדגימות פרוטליפוזומים שונות לצורך השוואה. (א) ליפוזומים reconstituted (משוחלבים מחדש) עם ממברנה פגומה (דולפת). (ב) ליפוזומים שחוקברו מחדש עם ממбраנה שלמה. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
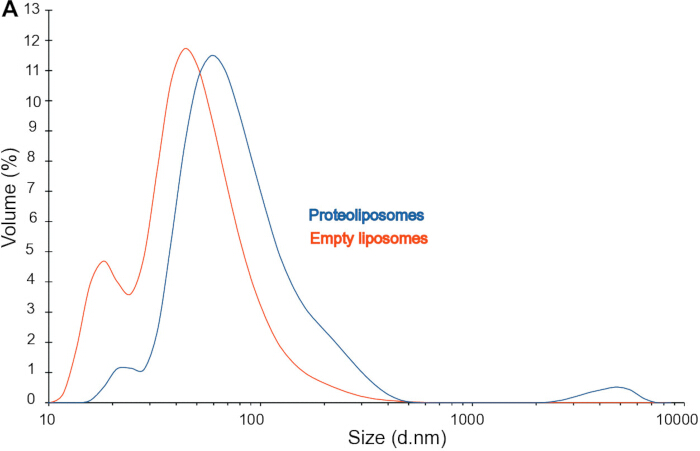
איור 6מדידות פיזור אור דינמי של ליפוזומים ריקים ושל פרוטאו-ליפוזומים משוחזרים של SC. מוצגים התפלגויות הגודל הממוצעות המשוקללות לפי נפח של ליפוזומים ריקים שהוצאו בקוואיזציה (בכתום) ושל פרוטוליפוזומים ששוחזרו באמצעות SC (בטורקיז). המדידות בוצעו כשלושה חזרות טכניות. לליפוזומים הריקים יש קוטר הידרודינמי ממוצע של 82.9 ± 0.8 ננומטר, בעוד של-RSPs יש קוטר הידרודינמי ממוצע של 10.6 ± 0.4 ננומטר. אנא לחץ כאן כדי לצפות בגרסה גדולה יותר של איור זה.
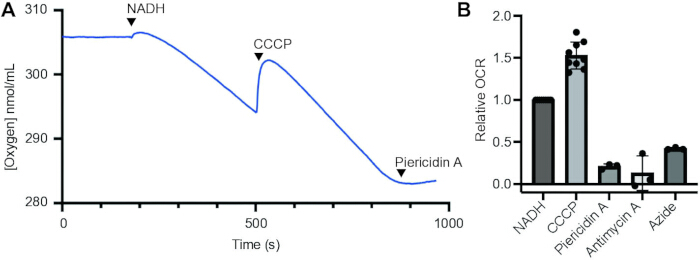
איור 7: בדיקות צריכת חמצן להערכת הצימוד של SCs ששוחזרו בליפוזומיםנמדדה צריכת חמצן כדי להעריך את הפעילות הנשימית ואת הצימוד של קומפלקסים של ה-ETC לאחר שחזור לתוך ליפוזומים שנוצרו על ידי אקסטרוזיה. (א) עקומת מדידה מייצגת של אלקטרודת חמצן עם תיקון רקע, המראה שינויים בריכוז החמצן בעקבות הוספה רצופית של NADH להפעלה של נשימה המונעת על ידי CI, CCCP לפיזור מפל הפרוטונים ומדידה של קצב צריכת חמצן (OCR) מקסימלי במצב של ביטול צימוד (uncoupled), piericidin A לעיכוב של CI, ו-Antimycin A לעיכוב של CIII2, או NaN3 (אזיד) לעיכוב CIV. (ב) כימות ה-OCR תחת התנאים המצוינים, כשהוא מתוקן בהתאם לשלב 7.10. נקודות הנתונים המוצגות עבור כל עקבה הן יחסיות ל-OCR לאחר הוספת NADH, יחד עם הממוצע ± SD (סטיות תקן). אנא לחצו כאן כדי לצפות בגרסה מוגדלת של דמות זו.
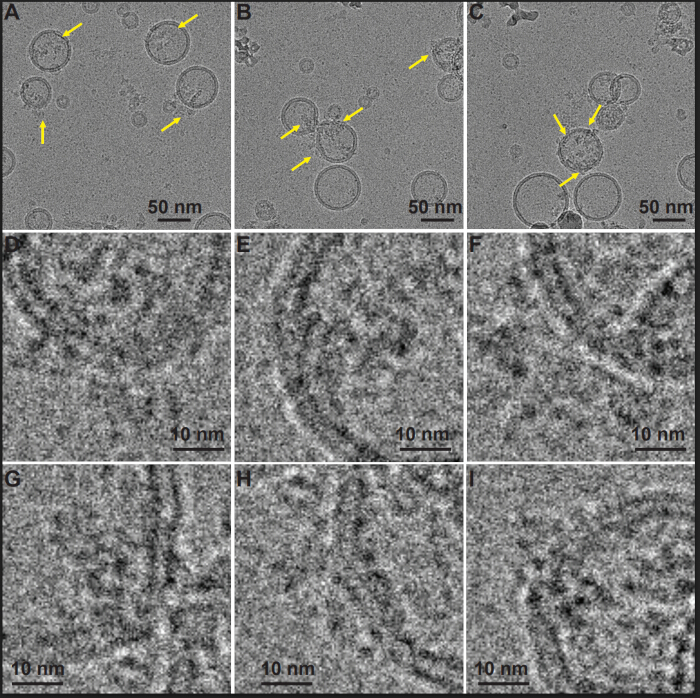
איור 8: ויזואליזציה באמצעות Cryo-EM של SCs שחופרו מחדש בממברנות של פרוטאו-ליפוזומים. (A–C) מיקרוגרפים אלקטרוניים מייצגים של רשתות שעברו סינון, המראים SCs שחוברו מחדש (reconstituted) הקשורים לממברנות של פרוטאו-ליפוזומים. SCs שחוברו מחדש מסומנים בחצים צהובים. סרגי קנה מידה = 50 ננומטר (nm). (D–I) חלקיקי SC מייצגים כשהם נצפים בהגדלה גבוהה יותר על ממברי הפרוטאוליפוזום. סרגי קנה מידה = 10 nm. אנא לחצו כאן כדי לצפות בגרסה מורחבת של איור זה.
דיון
מוצגת כאן שיטה פשוטה וניתנת לשחזור להרכבה מחדש של מקבצי סופר (SCs) של נשמה מיטוכונדריאלית לתוך פרוטאו-ליפוזומים מוגדרים, המאפשרת חקירה מבוקרת של מבנם ותפקודם. מספר שלבים בפרוטוקול זה הם קריטיים להצלחת ההרכבה מחדש. בניסיונינו, לליפוזומים שהופקו באמצעות אקסטרוזיה יש התפלגות גדלים אחידה יותר (כפי שנמדדה באמצעות פיזור אור דינמי) מאשר לאלו שהופקו באמצעות סוניקציה. הסרה יעילה של דטרגנט באמצעות עמודת ספין להסמכה (desalting spin column) ארוזה מראש היא חיונית כדי לעודד את איטום הממברנה וההטמעה הנכונה של ה-SCs בשכבה ליפידית כפולה; הסרה חלקית עלולה להוביל לפרוטאו-ליפוזומים דליפים או לא יציבים. אופטימיזציה של הרכב הליפידים, יחסי חלבון-ליפיד ובחירת הדטרגנט חשובה באותה מידה, שכן פרמטרים אלו משפיעים רבות על יעילות ההרכבה מחדש ועל יציבות ה-SCs. בדיקת ציפה במדרג סוכרוז (sucrose gradient flotation assay) שימושית לאופטימיזציה ראשונית; עם זאת, לאחר קביעת התנאים, עדיף להשתמש בפרוטאו-ליפוזומים ישירות לאחר עמודת הספין להסמכה לצורך ניתוחים מבניים ותפקודיים בהמשך, ובכך להימנע מאובדן דגימות ומהפרעה במהלך הפרקציה במדרג. נפח הפרקציה הדרוש להשגת פעילות משתנה בין הכנות שונות. יש להתאים את הנפח שמוסיפים לתערובת התגובה עבור הכנות שונות. אוריינטציית ה-SC הנשימתי בתוך ממברנת הפרוטאו-ליפוזום עשויה להשפיע משמעותית על מדידות הנשימה. הליך ההרכבה מחדש לא עבר אופטימיזציה כדי לכפות טופולוגיה אחת; לכן, למרות שצפויה אוכלוסייה מעורבת של אוריינטציות, בדיקות נגישות של פריציאניד ל-CI מצביעות על נטייה חזקה לזרועות פריפריאליות של CI הפונות החוצה.
האוריינטציה של הסופר-קומפלקסים ששוחלרו הוערכה באופן ניסיוני, ופעילות הפריציאניד של CI נמדדה בנוכחות ובהיעדר הדטרגנט. ב-RSPs שלמים, NADH שהוסף חיצונית יכול לגשת רק למולקולות CI שהזרוע ההיקפית שלהן חשופה למדיום החיצוני, בעוד שחדירה באמצעות דטרגנט מאפשרת ל-NADH גישה לכל הקומפלקסים. לכן, בדיקה זו מעריכה את חלקן של הזרועות ההיקפיות של CI הנגישות תפקודית הפונות למדיום החיצוני, במקום לספק קביעה מבנית מלאה של טופולוגיית הפרוטאו-ליפוזום. השוואה של הפעילויות שנמדדו בתנאים אלו הצביעה על כך ש-83.1% ± 0.04% מהרספירסומים (ה-SC) היו מוכוונים כך שהזרוע ההיקפית של CI פונה החוצה, מה שמעיד על הטיות אוריינטציה משמעותיות במהלך השחול.
מספר שינויים ואסטרטגיות לפתרון בעיות יכולים לשפר את השחזוריות והיציבות. בדיקות פעילות בתוך ג'ל (In-gel activity assays) עבור CI ו-CIV, שבוצעו על פראקציות מאוחדות שהוצאו באמצעות דיגיטונין ממדרגי סוכרוז, מראות פסים עבור SC, מה שמעיד על כך ש-SC אינו מתפרק לחלוטין במהלך השחזור (reconstitution). עם זאת, פס ה-SC חזק יותר בג'ל הפעילות של CI בהשוואה לג'ל הפעילות של CIV, מה שמרמז ש-CIV עשוי להתפרק חלקית מ-CI ומ-CIII2 לאחר השחזור (איור 4). התאמה של הרכב הליפידים עשויה לשפר את יציבות ה-SC. התפרקות חלקית של CIV עשויה לנבוע גם מבחירת הדטרגנט או מהסרה מהירה של הדטרגנט במהלך השחזור, דבר שעלול לערער אינטראקציות חלשונות יותר בין חלבונים בתוך הסופר-קומפלקס. אופטימיזציה נוספת של תנאי החלפת הדטרגנט עשויה לשפר את שימור ה-CIV. בנוסף, מזעור של מאמץ מכני, הימנעות משלבי טיהור מיותרים וטיפול זהיר בדגימות יכולים לסייע בשימור השלמות של הפרוטאו-ליפוזומים. עבור בדיקות תפקודיות, הבטחת איטום מלא של הפרוטאו-ליפוזומים היא קריטית, שכן דליפות בממברנה מונעות צימוד למדרג הפרוטונים הטרנס-ממברנלי. עבור הכנת רשתות ל-cryo-EM, השימוש ברשתות מצופות פחמן רציף הוא חשוב, כיוון שהדבר הוכח כמשפר את פיזור החלקיקים בתוך חורי הרשת19.
למרות יתרונותיה, לגישה זו יש מגבלות. פרוטאו-ליפוזומים אינם משחזרים באופן מלא את המורכבות ההרכבית והדינמית של ממברנת המיטוכונדריה הפנימית הטבעית, ודיסוציאציה חלקית של רכיבי ה-SC, ובמיוחד של CIV, נותרת אתגר. קריאות פונקציונליות עשויות להיות מושפעות גם מצימוד חלקי או מהטרוגניות ביעילות השחזור. עם זאת, בהשוואה למערכות המומסות בדטרגנטים, שיטה זו משמרת אינטראקציות בין ליפידים לחלבונים ותומכת בסביבת ממברנה דמוית-טבעית, תוך שהיא מציעה שליטה ניסיונית רבה יותר מגישות in situ. ככזו, היא מספקת פלטפורמה בעלת ערך לחקירה סיסטמטית של האופן שבו הרכב ליפידים ותכונות ממברנה מווסתים את היציבות והפעילות של ה-SC.
הבנת קשרים אלו חשובה במיוחד מכיוון ששיבוש בארגון הסופר-קומפלקסים הנשימתיים נקשר למגוון רחב של הפרעות מיטוכונדריאליות ומטבוליות31,32,33,34,35,36,37,38,39,40. פגמים בהרכבת קומפלקסים של ה-ETC, בסינתזת קרדיוליפין, או בשכתוב ליפידים, כפי שנצפה בהפרעות כגון תסמונת Leigh41,42,43,44,45,46,47, תסמונת Barth48,49,50,51,52,53,54, ותסמונת Sengers48, עלולים לערער את יציבות הסופר-קומפלקסים, לפגוע בהעברת אלקטרונים, להפחית את ייצור ה-ATP ולהגביר את ייצורם של מיני חמצן רחמניים (ROS). פגמים ביו-אנרגטיים אלו משפיעים באופן לא פרופורציונלי על רקמות בעלות דרישה אנרגטית גבוהה כגון הלב, השריר השלדי והמוח, ומובילים לפנוטיפים הכוללים קרדיומיופתיה, חוסר סבילות למאמץ וניוון עצבי36,37,38. לעומת זאת, ראיות חדשות מצביעות על כך שהיווצרות סופר-קומפלקסים יכולה לשמש לתפקידים מפצים ומגנים תחת עקה, על ידי ייצוב קומפלקסי ה-ETC והגבלה של ייצור פתולוגי של ROS55,56. פלטפורמת הפרוטאו-ליפוזומים המשוחזרת המתוארת כאן מספקת מערכת מבוקרת לבדיקה ישירה של האופן שבו שכתוב ליפידים הקשור למחלה, מוטציות או התערבויות פרמקולוגיות משפיעים על הרכבתם ותפקודם של סופר-קומפלקסים, ובכך מאפשרת מחקרים מכניסטיים של תפקוד לקוי במיטוכונדריה ומספקת בסיס לאסטרטגיות טיפוליות עתידיות.
שיעורי צריכת חמצן נמוכים עשויים לנבוע משילוב לקוי של supercomplex, דיסוציאציה חלקית של CIV, שאריות דטרגנט, מחסור ב-CoQ10 או בציטוכרום c, NADH מומס, או ריכוז חלבון נמוך בתא האוקסיגראף. יש לאשר את הרכבה מחדש (reconstitution) באמצעות בדיקת ציפה (flotation assay) או BN-PAGE, לוודא את שלמות הממברנה באמצעות כיבוי ACMA, להכין NADH טרי, ולבצע אופטימיזציה ליחס חלבון-ליפיד, לריכוז הקופקטורים, להסרת הדטרגנט ולריכוז הדגימה. פרוטליפוזומים דולפים עשויים לנבוע מהסרה חלקית של הדטרגנט, ריכוז דטרגנט גבוה מדי, טיפול גס, מחזורי הקפאה-הפשרה חוזרים, או ליפידים פגומים. אם נצפתה דליפת פרוטונים בבדיקת ACMA, יש לחזור על הסרת הדטרגנט באמצעות עמודת הסמכה (desalting column) שעברה שיווי משקל טרי, להימנע מסבב יתר של העמודה, להכין ליפוזומים טריים, לצמצם מתח מכני, ולהשתמש בפרוטליפוזומים מיד לאחר ההרכבה מחדש. אגרגציה במהלך שלבי הריכוז עלולה להתרחש עקב ריכוזים מקומיים גבוהים של חלבון או דטרגנט בממברנת המרכז. יש לרכז דגימות במחזורי צנטריפוגה קצרים (10 min), להחזיר את הדגימה לתליה בעדינות בין הסבבים, להימנע מריכוז יתר, לשמור על הדגימות ב-4 °C, ולהסיר אגרגטים גלויים באמצעות הבהרה (clarification) במהירות נמוכה לפני השימוש בהמשך הפרוטוקול. התנהגות ציפה לא עקבית עשויה לשקף גודל ליפוזום משתנה, הסרה חלקית של הדטרגנט, אגרגציה, ריבוד סוכרוז שגוי, או הפרעה למדרג (gradient) במהלך טעינת הדגימה או איסוף הפראקציות. יש להכין תמיסות סוכרוז טריות, לרבד את המדרגים באיטיות ללא ערבוב של הממשקים, להשתמש בליפוזומים שעברו אקסטרוזיה אחידה, לשמור על תנאי צנטריפוגה קבועים, ולאסוף פראקציות בעדינות מלמעלה למטה. פיזור חלקיקים לקוי ב-cryo-EM עשוי לנבוע מריכוז פרוטליפוזומים נמוך, אגרגציה, ספיחה מועדפת לפחמן, הרטבה לקויה של הרשת (grid), קרח עבה, או ספיגה (blotting) מופרזת. יש לבצע אופטימיזציה לריכוז הפרוטליפוזומים, להסיר אגרגטים לפני הכנת הרשת, להתאים את תנאי ה-glow-discharge, לבחון את זמן וכוח הספיגה, לסרוק סוגי רשתות או תמיכות פחמן שונות, ולהשתמש בדגימות שהוכנו טרי במקום שניתן.
גילויים
המחברים מצהירים כי אין ניגודי עניינים.
תודות
הסריקה של רשתות הדגימה בוצעה במעבדה המרכזית ל-BioEM באוניברסיטת UC Davis. אנו מודים לד"ר Fei Guo על הסיוע בסריקה. העבודה מומנה על ידי ה-NIGMS של ה-NIH במסגרת מענק R35GM137929 (JAL).
חומרים
| שם | חברה | מספר קטלוג | הערות |
|---|---|---|---|
| 1-palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine (POPC) | Avanti Research | 860320 | |
| 1-palmitoyl-2-oleoyl-sn-glycero-3-phosphoethanolamine (POPE) | Avanti Research | 850757 | |
| 1,3-bis(sn-3’-phosphatidyl)-sn-glycerol (cardiolipin, מרקמת לב בקר) | Avanti Research | 840012 | |
| 2-[4-(2-hydroxyethyl)piperazin-1-yl]ethanesulfonic acid --- HEPES | Sigma-Aldrich | H23830 | |
| 3-(N-morpholino)propanesulfonic acid (MOPS) | Sigma-Aldrich | M12545 | |
| 3,3′-Diaminobenzidine ---- DABB | Sigma-Aldrich | D4293 | |
| Carbonyl Cyanide m-Chlorophenylhydrazone ---- CCCP | Sigma-Aldrich | C2759 | |
| CHAPS | Sigma-Aldrich | 220201 | |
| כלורופורם | Sigma-Aldrich | 650948 | |
| קו-אנזים Q10 | Sigma-Aldrich | C9538 | |
| Cytochrome c מלב סוס | Sigma-Aldrich | C2506 | |
| דיגיטונין | Sigma-Aldrich | 300410 | |
| Ethylene glycol-bis(2-aminoethylether)-N,N,N′,N′-tetraacetic acid --- EGTA | Sigma-Aldrich | E3889 | |
| Ethylenediaminetetraacetic acid -- EDTA | Sigma-Aldrich | E6758 | |
| גליצרול | Sigma-Aldrich | G7893 | |
| Glyco-diosgenin | Anatrace | GDN101 | דטרגנט |
| Lauryl Maltose Neopentyl Glycol ---- LMNG | Sigma-Aldrich | NG310 | |
| מגנזיום כלוריד | Sigma-Aldrich | M8266 | |
| מיקסותיאזול | Sigma-Aldrich | T5580 | |
| NADH, מלח דיסודיום | Sigma-Aldrich | 481913 | |
| Nitrotetrazolium blue chloride | Sigma-Aldrich | N6876 | |
| Piericidin A | Sigma-Aldrich | 96861 | |
| אשלגן אצטט | Sigma-Aldrich | P5708 | |
| אשלגן כלוריד | Sigma-Aldrich | P3911 | |
| אשלגן פריציאניד | Sigma-Aldrich | 702587 | |
| אשלגן פוספט מונובסיס ---- KH2PO4 | Sigma-Aldrich | P0662 | |
| סודיום אזיד | Sigma-Aldrich | S2002 | |
| Sodium cholate hydrate | Sigma-Aldrich | C1254 | |
| סודיום כלוריד | Sigma-Aldrich | S9888 | |
| סודיום דיתיוניט | Sigma-Aldrich | 71699 | |
| סוכרוז | Sigma-Aldrich | S9378 | |
| TRIS | Sigma-Aldrich | T1503 | |
| ACMA (9-amino-6chloro-2-methoxyacridine) | Sigma-Aldrich | SML4162 | |
| ציוד וערכות | |||
| מסנן צנטריפוגלי Amicon® Ultra, 100 kDa MWCO 0.5 mL | Millipore | UFC5100 | |
| מסנן צנטריפוגלי Amicon® Ultra, 100 kDa MWCO 15 mL | Millipore | UFC9100 | |
| אולטרה-צנטריפוגה Beckman Optima TLX | Beckman Coulter | ||
| ג'ל BN-PAGE | ג'ל אלקטרופורזה של פוליאקרילאמיד במצב טבעי כחול (blue-native) | ||
| אולטרה-צנטריפוגה Beckman Optima XE | Beckman Coulter | ||
| מערכת ניקוי בפריקה זוהרת (Glow Discharge Cleaning System) | מערכת ניקוי בפריקה זוהרת | ||
| Glacios 2 Cryo-TEM עם גלאי Gatan K3 | Thermo Fisher Scientific | מיקרוסקופ אלקטרונים חודר (TEM) | |
| סט דוחס רקמות KIMBLE Dounce | Sigma-Aldrich | D9188 | |
| דחף אוטומטי Leica Automatic GP2 | Leica | ||
| Microfuge 16 | Beckman Coulter | A46474 | |
| מערכת כרומטוגרפיה NGC Discover 10 | Bio-Rad | 7880009 | |
| Oxygraph+ | מערכת אלקטרודת חמצן | ||
| עמודת הסמכה PD-10 | Cytiva | 28918007 | עמודת ספין להפרדה לפי גודל |
| ערכה לבדיקת חלבון Pierce BCA | Thermo Fisher Scientific | 23225 | ערכה לבדיקת חלבון באמצעות חומצה ביצינכונינית |
| סוניקטור Q-125 | Q-sonica | Q125-110 | |
| עמודת Sephadex G-25 M | עמודת ספין להסמכה עם שרף G-25 ארוזה מראש | ||
| קורא לוחות מיקרו SpectraMax M2 | Molecular Devices | ||
| Superose 6 increase 10/300 GL | Cytiva | 29091596 | מדיום לסינון ג'ל אגרוז מקושר |
| חבילת רוטור בזווית קבועה TLA-100.3 | Beckman Coulter | 349490 | |
| רוטור בזווית קבועה Type 50.2 Ti | Beckman Coulter | 337901 | |
| מי Milli-Q (MQ) | מים אולטרה-טהורים | ||
| Malvern Zetasizer ZS Dynamic Light Scattering (DLS) | Malvern Paranytical | ||
| מערכת Hansatech Oxygraph+ | Hansatech Instruments | ||
| מערכת ניקוי בפריקה זוהרת PELCO easiGlow | TED PELLA, INC | ||
| מערכת Vitrobot Mark IV | Thermo Fisher Scientific | מקפיא דחף (plunge freezer) | |
| רשתות נחושת Quantifoil R 1.2/1.3 300 mesh עם 2 nm פחמן | TED PELLA, INC | 668-300-Cu-100 | מצופות פחמן נקבי (holey carbon) |
| מיני-אקסטרודר Avanti | Avanti Lipids | 610000 |
מקורות
- Mitchell P. Coupling of phosphorylation to electron and hydrogen transfer by a chemi-osmotic type of mechanism. Nature. 1961;191:144-8.
- Dudkina NV, Kudryashev M, Stahlberg H, Boekema EJ. Interaction of complexes I, III, and IV within the bovine respirasome by single particle cryoelectron tomography. Proc Natl Acad Sci U S A. 2011;108:15196-200.
- Althoff T, Mills DJ, Popot JL, Kühlbrandt W. Arrangement of electron transport chain components in bovine mitochondrial supercomplex I1III2IV1. EMBO J. 2011;30:4652-64.
- Schäfer E, Dencher NA, Vonck J, Parcej DN. Three-dimensional structure of the respiratory chain supercomplex I1III2IV1 from bovine heart mitochondria. Biochemistry. 2007;46:12579-85.
- Schägger H, Pfeiffer K. Supercomplexes in the respiratory chains of yeast and mammalian mitochondria. EMBO J. 2000;19:1777-83.
- Milenkovic D, Blaza JN, Larsson NG, Hirst J. The enigma of the respiratory chain supercomplex. Cell Metab. 2017;25:765-76.
- Berndtsson J, et al. Respiratory supercomplexes enhance electron transport by decreasing cytochrome c diffusion distance. EMBO Rep. 2020;21. doi:10.15252/embr.202051015.
- Moe A, Di Trani J, Rubinstein JL, Brzezinski P. Cryo-EM structure and kinetics reveal electron transfer by 2D diffusion of cytochrome c in the yeast III-IV respiratory supercomplex. Proc Natl Acad Sci U S A. 2021;118. doi:10.1073/pnas.2021157118.
- Blaza JN, et al. Kinetic evidence against partitioning of the ubiquinone pool and the catalytic relevance of respiratory-chain supercomplexes. Proc Natl Acad Sci U S A. 2014;111:15735-40.
- Diaz F, Enríquez JA, Moraes CT. Cells lacking Rieske iron-sulfur protein have a reactive oxygen species-associated decrease in respiratory complexes I and IV. Mol Cell Biol. 2012;32:415-29.
- Maranzana E, et al. Mitochondrial respiratory supercomplex association limits production of reactive oxygen species from complex I. Antioxid Redox Signal. 2013;19:1469-80.
- Schägger H, et al. Significance of respirasomes for the assembly/stability of human respiratory chain complex I. J Biol Chem. 2004;279:36349-53.
- Acín-Pérez R, et al. Respiratory complex III is required to maintain complex I in mammalian mitochondria. Mol Cell. 2004;13:805-15.
- Letts JA, Sazanov LA. Clarifying the supercomplex: the higher-order organization of the mitochondrial electron transport chain. Nat Struct Mol Biol. 2017;24:800-8.
- Protasoni M, et al. Respiratory supercomplexes act as a platform for complex III-mediated maturation of human mitochondrial complexes I and IV. EMBO J. 2020;39. doi:10.15252/embj.2019102817.
- Pöverlein MC, Jussupow A, Kim H, Kaila VRI. Protein-induced membrane strain drives supercomplex formation. eLife. 2024;13. doi:10.7554/eLife.102104.1.
- Mandala VS, MacKinnon R. Voltage-sensor movements in the Eag Kv channel under an applied electric field. Proc Natl Acad Sci U S A. 2022;119. doi:10.1073/pnas.2214151119.
- Falzone ME, MacKinnon R. Gβγ activates PIP2 hydrolysis by recruiting and orienting PLCβ on the membrane surface. Proc Natl Acad Sci U S A. 2023;120. doi:10.1073/pnas.2301121120.
- Grba DN, et al. Molecular mechanism of the ischemia-induced regulatory switch in mammalian complex I. Science. 2024;384:1247-53.
- Tao X, Zhao C, MacKinnon R. Membrane protein isolation and structure determination in cell-derived membrane vesicles. Proc Natl Acad Sci U S A. 2023;120. doi:10.1073/pnas.2302325120.
- Zheng W, Chai P, Zhu J, Zhang K. High-resolution in situ structures of mammalian respiratory supercomplexes. Nature. 2024;631:232-9.
- Nakano A, et al. Structures of respiratory supercomplexes and ATP synthase oligomers in mammalian mitochondrial inner membrane. Nat Commun. 2026;17:4075. doi:10.1038/s41467-026-70578-x.
- Coupland CE, et al. High-resolution electron cryomicroscopy of V-ATPase in native synaptic vesicles. Science. 2024;385:168-74.
- Letts JA, Fiedorczuk K, Sazanov LA. The architecture of respiratory supercomplexes. Nature. 2016;537:644-8.
- Letts JA, et al. Structures of respiratory supercomplex I+III2 reveal functional and conformational crosstalk. Mol Cell. 2019;75:1131-46.e6.
- Jha P, Wang X, Auwerx J. Analysis of mitochondrial respiratory chain supercomplexes using blue native polyacrylamide gel electrophoresis (BN-PAGE). Curr Protoc Mouse Biol. 2016;6:1-14.
- Biner O, Fedor JG, Yin Z, Hirst J. Bottom-up construction of a minimal system for cellular respiration and energy regeneration. ACS Synth Biol. 2020;9:1450-9.
- Wright JJ, et al. Reverse electron transfer by respiratory complex I catalyzed in a modular proteoliposome system. J Am Chem Soc. 2022;144:6791-801.
- Lee SY, Letts JA, MacKinnon R. Functional reconstitution of purified human Hv1 H+ channels. J Mol Biol. 2009;387:1055-60.
- Caldeira D de AF, Oliveira DF de, Cavalcanti-de-Albuquerque JP, Nascimento JHM, Zin WA, et al. Isolation of mitochondria from fresh mice lung tissue. Front Physiol. 2021;12:748261. doi:10.3389/fphys.2021.748261.
- Shi H, et al. Global burden of ischaemic heart disease from 2022 to 2050: projections of incidence, prevalence, deaths, and disability-adjusted life years. Eur Heart J Qual Care Clin Outcomes. 2025;11:355-66.
- Rahman S. Mitochondrial disease in children. J Intern Med. 2020;287:609-33.
- Pérez-Albert P, et al. Mitochondrial disease in children: the nephrologist’s perspective. JIMD Rep. 2018;42:61-70.
- Gorman GS, et al. Prevalence of nuclear and mitochondrial DNA mutations related to adult mitochondrial disease. Ann Neurol. 2015;77:753-9.
- Pitceathly RDS, Rahman S. Mitochondrial DNA-related diseases associated with single large-scale deletions and point mutations. In: Gasparre G, Porcelli AM, editors. The Human Mitochondrial Genome: From Basic Biology to Disease. London: Academic Press; 2020. p. 353-74.
- Morán M, et al. Mitochondrial respiratory chain dysfunction: implications in neurodegeneration. Free Radic Biol Med. 2012;53:595-609.
- Chinnery PF. Primary mitochondrial disorders overview. In: Adam MP, Feldman J, Mirzaa GM, Pagon RA, Wallace SE, Bean LJH, et al., editors. GeneReviews®. Seattle: University of Washington, Seattle; 1993–2026. Available from: https://www.ncbi.nlm.nih.gov/books/NBK1224/
- Ellis CE, et al. Mitochondrial lipid abnormality and electron transport chain impairment in mice lacking α-synuclein. Mol Cell Biol. 2005;25:10190-201.
- Hekimi S, Wang Y, Noë A. Mitochondrial ROS and the effectors of the intrinsic apoptotic pathway in aging cells: the discerning killers. Front Genet. 2016;7:161. doi:10.3389/fgene.2016.00161.
- Chouchani ET, et al. Ischaemic accumulation of succinate controls reperfusion injury through mitochondrial ROS. Nature. 2014;515:431-5.
- Van de Wal MAE, et al. Ndufs4 knockout mouse models of Leigh syndrome: pathophysiology and intervention. Brain. 2022;145:45-63.
- Hoefs SJG, et al. NDUFA10 mutations cause complex I deficiency in a patient with Leigh disease. Eur J Hum Genet. 2011;19:270-4.
- Ostergaard E, et al. Respiratory chain complex I deficiency due to NDUFA12 mutations as a new cause of Leigh syndrome. J Med Genet. 2011;48:737-40.
- Marin SE, et al. Leigh syndrome associated with mitochondrial complex I deficiency due to novel mutations in NDUFV1 and NDUFS2. Gene. 2013;516:162-7.
- Adjobo-Hermans MJW, et al. NDUFS4 deletion triggers loss of NDUFA12 in Ndufs4−/− mice and Leigh syndrome patients: a stabilizing role for NDUFAF2. Biochim Biophys Acta Bioenerg. 2020;1861:148213. doi:10.1016/j.bbabio.2020.148213.
- Leshinsky-Silver E, et al. NDUFS4 mutations cause Leigh syndrome with predominant brainstem involvement. Mol Genet Metab. 2009;97:185-9.
- Piekutowska-Abramczuk D, et al. NDUFB8 mutations cause mitochondrial complex I deficiency in individuals with Leigh-like encephalomyopathy. Am J Hum Genet. 2018;102:460-7.
- Bertero E, Kutschka I, Maack C, Dudek J. Cardiolipin remodeling in Barth syndrome and other hereditary cardiomyopathies. Biochim Biophys Acta Mol Basis Dis. 2020;1866:165803. doi:10.1016/j.bbadis.2020.165803.
- Xu Y, et al. Loss of protein association causes cardiolipin degradation in Barth syndrome. Nat Chem Biol. 2016;12:641-7.
- McKenzie M, Lazarou M, Thorburn DR, Ryan MT. Mitochondrial respiratory chain supercomplexes are destabilized in Barth syndrome patients. J Mol Biol. 2006;361:462-9.
- Acehan D, Xu Y, Stokes DL, Schlame M. Comparison of lymphoblast mitochondria from normal subjects and patients with Barth syndrome using electron microscopic tomography. Lab Invest. 2007;87:40-8.
- Dudek J, et al. Cardiolipin deficiency affects respiratory chain function and organization in an induced pluripotent stem cell model of Barth syndrome. Stem Cell Res. 2013;11:806-19.
- Hagen TM, et al. Acetyl-L-carnitine fed to old rats partially restores mitochondrial function and ambulatory activity. Proc Natl Acad Sci U S A. 1998;95:9562-6.
- Schlame M, et al. Phospholipid abnormalities in children with Barth syndrome. J Am Coll Cardiol. 2003;42:1994-9.
- Ayala-Hernandez MG, et al. Respiratory complex III2 assembles complex I via toxic intermediate in mitochondrial disease. bioRxiv. 2025:doi:10.1101/2025.06.17.660237.
- Liang C, et al. Formation of I2+III2 supercomplex rescues respiratory chain defects. Cell Metab. 2025;37:441-59.e11.
הדפסות חוזרות והרשאות
מאמר זה פורסם
הסרטון יגיע בקרוב